يراقب مقايسة FRET ذات الدقة الزمنية حركية انقسام ركيزة Mpro لتقييم ما إذا كانت جزيئات PROTACs تؤثر على النشاط الإنزيمي، مما يتيح الفصل الوظيفي بين تأثيرات التحلل والتأثيرات التثبيطية.
مقالة منهجية
مقايسة نشاط FRET ذات الدقة الزمنية للتمييز بين التثبيط الإنزيمي والتحلل بوساطة PROTAC لبروتين Mpro الخاص بفيروس SARS-CoV-2
في هذه المقالة
ملخص
الملخص
تظهر الكيميرات الموجهة للتحلل البروتيني (PROTACs) كإستراتيجية واعدة لتطوير الأدوية المضادة للفيروسات، وهي تختلف ميكانيكيًا عن المثبطات الكلاسيكية ذات الجزيئات الصغيرة. تعتمد العديد من تصميمات الـ PROTAC التي تستهدف البروتيازات الفيروسية، مثل البروتياز الرئيسي لفيروس SARS-CoV-2 (Mpro)، على رؤوس حربية مشتقة من مثبطات الموقع النشط، وبذلك تجمع بين التحلل الناجم عن التقارب والتثبيط الإنزيمي المحتمل. وتؤدي هذه الوظيفة المزدوجة إلى تعقيد التمييز التجريبي بين التأثيرات الناتجة عن التحلل والتثبيط المباشر للنشاط التحفيزي على التكاثر الفيروسي. ولمعالجة ذلك، قمنا بتطوير مقايسة تعتمد على نقل طاقة الرنين الفلوريسنتي (FRET) لقياس النشاط التحفيزي لبروتين Mpro المؤتلف في وجود المثبطات والمحللات. تستخدم المقايسة ركيزة ببتيدية فلورية مُخمَدة (MI-2822) تحتوي على تسلسل القطع النموذجي لـ Mpro، يحيط بها فلوروفور ومخمد. ويؤدي التحلل البروتيني إلى زيادة في الفلورة تعتمد على الوقت، مما يسمح بالمراقبة الحركية المستمرة لنشاط الإنزيم. يتم تنقية Mpro المؤتلف المُعبّر عنه في Escherichia coli وتحضينه مع ركيزة FRET تحت ظروف منظم محددة، ويتم تسجيل الفلورة بمرور الوقت لاستخلاص ملفات النشاط الإنزيمي. يتم ضبط المقايسة باستخدام مثبط الموقع النشط المعتمد سريريًا nirmatrelvir، والذي يثبط قطع الركيزة بكفاءة. وفي المقابل، فإن الـ PROTACs التي تستهدف Mpro خارج الشق التحفيزي لا تقلل بشكل كبير من زيادة الفلورة، مما يشير إلى أنها لا تثبط النشاط الإنزيمي بشكل ملموس تحت الظروف المختبرة. يوفر هذا البروتوكول نهجًا قويًا وقابلًا للتكرار للتمييز بين التثبيط الإنزيمي والآليات المرتبطة بالتحلل. وهو قابل للتطبيق على نطاق واسع للتوصيف الميكانيكي لـ PROTACs والجزيئات ثنائية الوظيفة الأخرى التي تستهدف البروتيازات الفيروسية.
المقدمة
يعتمد التحلل البروتيني المستهدف (TPD) على نظام اليوبيكويتين-بروتيازوم (UPS) الخلوي للتخلص انتقائيًا من بروتينات معينة. وتعتمد هذه الاستراتيجية على جزيئات ثنائية الوظيفة، يُشار إليها عادةً باسم الكيميرات الموجهة للتحلل البروتيني (PROTACs)، والتي ترتبط في آن واحد ببروتين مستهدف وبإنزيم E3 ubiquitin ligase2. وتمثل إنزيمات E3 ubiquitin ligases فئة كبيرة ومتنوعة من الإنزيمات الخلوية3 التي تحفز عملية إضافة اليوبيكويتين إلى البروتينات الركيزة، مما يؤدي إلى تعليمها لتحللها بواسطة البروتيازوم4.
تتكون جزيئات PROTACs من ربيطة للبروتين المستهدف وربيطة لإنزيم E3 ligase، متصلتين عبر رابط كيميائي5. ومن خلال تحفيز التقارب بين البروتين المستهدف وإنزيم E3 ligase، تعزز جزيئات PROTACs تكوين معقد ثلاثي يسمح بنقل اليوبيكويتين ومن ثم تحلل البروتين المستهدف بواسطة البروتيازوم6,7. ويوفر هذا النهج عدة مزايا مقارنة بمثبطات الجزيئات الصغيرة التقليدية8؛ إذ يمكن لجزيئات PROTACs أن تعمل بشكل تحفيزي، مما يسمح باستنزاف فعال للهدف بتركيزات منخفضة، كما يمكنها الاستفادة من الربائط أو المثبطات الموجودة مسبقاً كأجزاء استهداف5. علاوة على ذلك، قد تحافظ الاستراتيجيات القائمة على التحلل على فعاليتها في وجود طفرات تسبب المقاومة9,10 ويمكن تطبيقها على البروتينات التي يصعب تثبيطها مباشرة، مثل تلك التي تفتقر إلى جيوب ارتباط محددة بوضوح11.
في سياق تطوير الأدوية المضادة للفيروسات، تعتمد العديد من جزيئات PROTACs المُبلغ عنها والتي تستهدف البروتينات الفيروسية على رؤوس حربية مشتقة من مثبطات الموقع النشط10,12,13,14. ونتيجة لذلك، غالباً ما تجمع هذه الجزيئات بين التثبيط الإنزيمي واستنفاد الهدف المدفوع بالتحلل، مما يؤدي إلى تعقيد التفسير الميكانيكي للنشاط المضاد للفيروسات. وبينما تدمج المقايسات الخلوية المضادة للفيروسات النتيجة المشتركة لعمليات متعددة، بما في ذلك تحلل الهدف وتثبيط التكاثر الفيروسي، فإنها غالباً لا تسمح بتمييز واضح بين التأثيرات المدفوعة بالتثبيط وتلك المدفوعة بالتحلل. بالإضافة إلى ذلك، تفتقر العديد من البروتينات الفيروسية إلى جيوب ارتباط أو مواقع تحفيزية محددة بوضوح، مما يحد من إمكانية الوصول إليها باستخدام استراتيجيات تصميم PROTAC الحالية.
لمواجهة هذا التحدي، قمنا بتطوير مقايسة تعتمد على نقل طاقة الرنين الفلوروسنتية (FRET) باستخدام ركيزة ببتيدية لإنزيم Mpro الخاص بفيروس SARS-CoV-2، مما يتيح مراقبة النشاط الإنزيمي بدقة زمنية. ويسمح هذا النهج بالتمييز بين التأثيرات المرتبطة بـ PROTAC والتثبيط الإنزيمي المباشر. وباستخدام هذه المقايسة، قمنا بتقييم مُحطّم يستهدف Mpro ويرتبط خارج الشق التحفيزي ولا يتداخل بشكل ملموس مع نشاط البروتياز في ظل الظروف المختبرة، مع احتفاظه بقدرته على التحلل. وبالتوازي مع ذلك، استُخدم مثبط Mpro المعتمد سريرياً، nirmatrelvir، كعينة ضابطة، وأدى ذلك إلى انخفاض ملحوظ في النشاط الإنزيمي.
باختصار، يوفر هذا المقايسة طريقة قوية للتمييز بين التثبيط الإنزيمي والتأثيرات المرتبطة بالتحلل. وهي ذات قيمة خاصة لتوصيف المواد المحللة التي تستهدف البروتينات النشطة إنزيميًا، حيث يكون فصل هذه الآليات أمرًا ضروريًا لفهم نشاطها المضاد للفيروسات (الشكل 1).
البروتوكول
1. تحضير المواد
- تجهيز نظام التعبير
- استخدم خلايا Escherichia coli BL21 Rosetta2 ذات الكفاءة الكيميائية كمضيف للتعبير.
- استخدم ناقل التعبير pET28a(+) الذي يشفر البروتين Mpro الخاص بفيروس SARS-CoV-2 مع علامات 6× histidine عند الطرفين النتروجيني (N) والكربوكسيلي (C).
- تجهيز وسط النمو
- جهز 5 L من وسط لوريا-بيرتاني (LB) عن طريق إذابة 10 g/L من التريبتون، و5 g/L من مستخلص الخميرة، و10 g/L من كلوريد الصوديوم (NaCl) في ماء مقطر. عقم الوسط باستخدام الموصدة (autoclaving) عند 121 °C لمدة 20 min.
- تجهيز المحلول المخزون من IPTG
- أذب 4.20 g من IPTG في 45 mL من الماء المقطر لتجهيز محلول مخزون بتركيز 0.4 M. يحفظ المحلول المخزون عند −20 °C.
- تجهيز المحاليل المنظمة
- جهز 1 L من محلول التحلل الخاص بـ Mpro (MLB) الذي يحتوي على 50 mM Tris، و300 mM NaCl، و5% glycerol، و0.5% Triton X-100 (pH 7.5).
- جهز 4 L من محلول بروتين Mpro (MB) الذي يحتوي على 20 mM Tris و150 mM NaCl (pH 7.5).
- جهز 500 mL من محلول الغسيل (WB) الذي يحتوي على 20 mM Tris، و150 mM NaCl، و20 mM imidazole (pH 7.5).
- جهز 100 mL من كل من محلول الشطف 1 (100 mM imidazole)، ومحلول الشطف 2 (250 mM imidazole)، ومحلول الشطف 3 (500 mM imidazole)، على أن يحتوي كل منها على 20 mM Tris و150 mM NaCl (pH 7.5).
- جهز 1 mL من محلول العينة بتركيز 4× الذي يحتوي على mercaptoethanol، وbromophenol blue، وglycerol، وTris (pH 6.8)، وsodium dodecyl sulfate (SDS)، وماء مقطر.
- جهز 1 L من المحلول الملحي المنظم بالفوسفات (PBS) الذي يحتوي على KCl، وKH₂PO₄، وNa₂HPO₄، وNaCl في ماء مقطر.
2. تعبير Mpro في Escherichia coli
- تحويل بلازميد التعبير إلى E. coli
- تحضير خلايا E. coli Rosetta2 كيميائية الكفاءة باستخدام طقم تحويل تجاري. تلقيح 5 mL من وسط المرق فائق الأمثل (SOB) وتحضين المزرعة طوال الليل عند 37 °C مع الرج.
- نقل المزرعة التي حضنت طوال الليل إلى 100 mL من وسط SOB وتنمية الخلايا حتى تصل الكثافة الضوئية OD600 إلى 0.4–0.5. تبريد المزرعة على الثلج وطردها مركزياً عند 1,800 × g لمدة 5 min.
- غسل كتلة الخلايا المترسبة مرتين بمحلول الغسيل وإعادة تعليقها في محلول الكفاءة. تقسيم الخلايا كيميائية الكفاءة إلى حصص سعة كل منها 50 µL وتخزينها عند −70 °C.
- تحويل بلازميد التعبير إلى البكتيريا كيميائية الكفاءة
- إذابة حصة واحدة من الخلايا كيميائية الكفاءة على الثلج لمدة 10 min. إضافة 1 µL من DNA البلازميد (<50 ng) والخلط برفق.
- تحضين الخلايا على الثلج لمدة 30 min. نشر الخلايا المحولة على أغار LB (أغار 1.5%) يحتوي على 100 µg/mL كاناميسين وتحضين الأطباق طوال الليل (حوالي 18 h) عند 37 °C.
- توسيع المزرعة البكتيرية
- تلقيح 5 mL من وسط LB يحتوي على 100 µg/mL كاناميسين بمستعمرة واحدة. تحضين المزرعة طوال الليل عند 37 °C مع الرج بسرعة 200 rpm.
- نقل المزرعة التي حضنت طوال الليل إلى 100 mL من وسط LB يحتوي على 100 µg/mL كاناميسين. تحضين المزرعة طوال الليل تحت نفس الظروف.
- نقل 35 mL من المزرعة التي حضنت طوال الليل إلى 1 L من وسط LB يحتوي على 100 µg/mL كاناميسين. تحضين المزرعة عند 37 °C مع الرج بسرعة 140 rpm حتى تصل الكثافة الضوئية OD600 إلى 1.0–1.2.
- تحفيز تعبير Mpro
- تبريد المزرعة إلى 16 °C. إضافة 1 mL من 0.4 M IPTG (تركيز نهائي 0.4 mM) لتحفيز تعبير البروتين.
- تحضين المزرعة عند 16 °C مع الرج بسرعة 140 rpm لمدة 72 h.
3. حصاد وتنقية Mpro
- حصاد الخلايا البكتيرية
- قم بطرد المزرعة مركزياً عند 5,000 × g و4 °C لمدة 1 h. تخلص من الطافي وأعد تعليق الراسب في 35 mL من المحلول الملحي الموقوف بالفوسفات (PBS).
ملاحظة: تأكد من إعادة تعليق الراسب بشكل كامل لزيادة استعادة البروتين خلال عمليات التنقية اللاحقة. - انقل المعلق إلى أنبوب طرد مركزي سعة 50 mL وقم بطرده مركزياً عند 6,800 × g و4 °C لمدة 10 min. تخلص من الطافي وخزّن راسب الخلايا عند −20 °C.
- قم بطرد المزرعة مركزياً عند 5,000 × g و4 °C لمدة 1 h. تخلص من الطافي وأعد تعليق الراسب في 35 mL من المحلول الملحي الموقوف بالفوسفات (PBS).
- تحلل الخلايا
- قم بإذابة راسب الخلايا على الثلج لمدة 15–30 min. أعد تعليق الراسب في 80 mL من منظم تحلل Mpro (MLB) حتى يصبح متجانساً.
ملاحظة: حافظ على المنظم والعينة على الثلج طوال هذه الخطوة لتقليل تحلل البروتين وتجمعه. - قم بمعالجة المعلق بالموجات فوق الصوتية على الثلج لمدة 10 min باستخدام نبضات مدتها 30 s وبسعة 50–60% مع فترات تبريد مدتها 2 min بين النبضات.
- انقل المتحلل إلى أنابيب طرد مركزي وقم بطرده مركزياً عند 60,000 × g و4 °C لمدة 1 h. اجمع الطافي المصفى للتنقية بالألفة.
- قم بإذابة راسب الخلايا على الثلج لمدة 15–30 min. أعد تعليق الراسب في 80 mL من منظم تحلل Mpro (MLB) حتى يصبح متجانساً.
- تنقية Mpro بواسطة كروماتوغرافيا الألفة للمعدن المثبت
- قم بموازنة عمود الألفة باستخدام 10 أحجام عمود (CV) من الماء المقطر، يليها 10 CV من منظم بروتين Mpro (MB). قم بتحضير منظمات الغسل والاستخلاص قبل تحميل العينة.
ملاحظة: تجنب إدخال فقاعات الهواء إلى العمود، لأنها قد تقلل من كفاءة الارتباط. - حمّل المتحلل المصفى على العمود الموازن بمعدل تدفق منخفض. اجمع السائل المار.
ملاحظة: حافظ على معدل تدفق منخفض بما يكفي لزيادة ارتباط البروتين المسمى بـ His-tagged. - اغسل العمود بـ 50 mL من منظم الغسل (WB). اجمع آخر 2 mL من جزء الغسل لتقييم الجودة إذا لزم الأمر.
- استخلص البروتين المرتبط بالتتابع باستخدام 6 mL من منظم الاستخلاص 1 (ثلاثة أجزاء سعة 2 mL)، و6 mL من منظم الاستخلاص 2 (ثلاثة أجزاء سعة 2 mL)، و8 mL من منظم الاستخلاص 3 (أربعة أجزاء سعة 2 mL). احتفظ بجميع الأجزاء المجموعة على الثلج.
- قم بموازنة عمود الألفة باستخدام 10 أحجام عمود (CV) من الماء المقطر، يليها 10 CV من منظم بروتين Mpro (MB). قم بتحضير منظمات الغسل والاستخلاص قبل تحميل العينة.
- تجديد عمود الألفة
- اغسل العمود بالتتابع باستخدام 10 CV من منظم الاستخلاص 3، و10 CV من منظم بروتين Mpro ، و10 CV من الماء المقطر، و10 CV من الإيثانول بتركيز 20%.
- تقييم جودة البروتين
- امزج 45 µL من كل عينة بروتين مع 15 µL من منظم العينات بتركيز 4×. سخن العينات عند 100 °C لمدة 10 min وقم بطردها مركزياً لفترة وجيزة.
- افصل العينات على هلام SDS-PAGE بتركيز 10–12% عند 150 V حتى تصل جبهة الصبغة إلى أسفل الهلام.
- صبغ الهلام بصبغة Coomassie لمدة 15–30 min. اشطف الهلام بالماء المقطر وقيم نقاء البروتين (الوزن الجزيئي المتوقع: حوالي 36 kDa).
4. تحضير البروتين
- استبدال المحلول المنظم وتركيز البروتين
- استبدل المحلول المنظم للبروتين بمحلول منظم بروتين Mpro (MB) باستخدام مرشحات طرد مركزي (MWCO: 10 kDa). ركز محلول البروتين حتى يصل الحجم النهائي إلى 1 mL تقريباً.
- تقدير كمية البروتين
- قس تركيز البروتين باستخدام مقياس الطيف الضوئي. قم بتصفير الجهاز باستخدام MB قبل عملية القياس.
- احسب تركيز البروتين باستخدام معامل الامتصاص المناسب (ε = 0.931).
5. تحسين ظروف المقايسة
- تحضير كواشف المقايسة
- تحضير محلول مخزون بتركيز 3 µM من بروتين Mpro المُنقى ومحلول مخزون بتركيز 300 µM من الركيزة الببتيدية في محلول منظم بروتين Mpro (MB).
- تحضير التخفيفات التسلسلية
- تحضير ست تخفيفات تسلسلية بمقدار ضعفين لمحلول Mpro المخزون في MB.
- تحضير ثلاث تخفيفات تسلسلية بمقدار ضعفين للركيزة الببتيدية في MB.
- ضبط قارئ الأطباق
- تسخين قارئ الأطباق مسبقاً إلى 37 °C. ضبط طول موجة الاستثارة على 320 nm، وطول موجة الانبعاث على 420 nm (عرض نطاق 20 nm)، وفاصل القياس على 60 s لإجمالي زمن قياس قدره 60 min.
ملاحظة: يجب تحضير جميع مكونات المقايسة قبل إضافة الركيزة، لأن التفاعل يبدأ فور إضافة الركيزة.
- تسخين قارئ الأطباق مسبقاً إلى 37 °C. ضبط طول موجة الاستثارة على 320 nm، وطول موجة الانبعاث على 420 nm (عرض نطاق 20 nm)، وفاصل القياس على 60 s لإجمالي زمن قياس قدره 60 min.
- تحضير طبق المقايسة
- إضافة 25 µL من كل تخفيف لـ Mpro إلى الأعمدة 1-6 في طبق أسود ذي 96 بئراً. إضافة 25 µL من MB إلى العمود 7 ليكون بمثابة ضابط خلو الإنزيم.
- إضافة 100 µL من MB إلى كل بئر.
ملاحظة: استخدم أطباقاً سوداء ذات 96 بئراً لتقليل الفلورة الخلفية وتحسين إشارة الفلورة.
- بدء التفاعل
- إضافة 25 µL من الركيزة الببتيدية إلى الصفوف A–C. إضافة 25 µL من MB إلى الصف D ليكون بمثابة ضابط خلو الركيزة.
- بدء الحصول على قياسات الفلورة فور إضافة الركيزة.
- تحليل البيانات
- تصدير بيانات الفلورة ورسم وحدات الفلورة النسبية (RFU) كدالة في الزمن.
- اختيار تركيزات Mpro والركيزة التي توفر نسبة إشارة إلى ضجيج عالية دون الوصول إلى تشبع مبكر للإشارة (مثلاً: 500 nM من Mpro و 50 µM من الركيزة).
- تحديد المعايير الحركية (اختياري)
- تحديد المعايير الحركية للركيزة المولدة للفلورة عن طريق مواءمة سرعات التفاعل الأولية مع معادلة Michaelis–Menten. تحويل وحدات الفلورة إلى تركيز المنتج باستخدام منحنى معايرة تم إنشاؤه بواسطة 2-amino-N-(3-aminopropyl) benzamide. تتوفر تفاصيل تخليق فلوروفور المعايرة في الملف التكميلي 1.
6. إجراء مقايسة FRET
- تجهيز قارئ الأطباق
- سخن قارئ الأطباق مسبقاً إلى 37 °C. اضبط طول موجة الاستثارة على 320 nm، وطول موجة الانبعاث على 420 nm (بعرض نطاق 20 nm)، وفاصل الاستحواذ على 60 s لإجمالي وقت قياس قدره 60 min.
- تجهيز كواشف المقايسة
- قم بتحضير المحاليل الأصلية من Mpro المنقى (3 µM)، والركيزة الببتيدية (300 µM)، والمركبات المختبرة في منظم بروتين Mpro (MB).
- قم بتحضير تخفيفات تسلسلية لكل مركب مختبر في DMSO مع الحفاظ على تركيز نهائي ثابت من DMSO في جميع العينات. قم بتضمين ضوابط تحتوي على DMSO فقط وضوابط تحتوي على المنظم فقط.
- تجهيز خلائط التفاعل
- خفف كل مركب مختبر أو ضابط في 100 µL من MB. أضف 25 µL من Mpro للوصول إلى تركيز نهائي للإنزيم يبلغ 500 nM.
- انقل خلائط التفاعل فوراً إلى آبار طبق أسود ذو 96 بئراً.
- بدء التفاعل
- أضف 25 µL من الركيزة الببتيدية إلى كل بئر للوصول إلى تركيز نهائي للركيزة يبلغ 50 µM (حجم التفاعل النهائي: 150 µL).
- ابدأ استحواذ الفلورة فور إضافة الركيزة.
ملاحظة: ابدأ استحواذ البيانات مباشرة بعد إضافة الركيزة لضمان القياس الدقيق لحركية التفاعل الأولية.
- استحواذ بيانات الفلورة
- سجل الفلورة بشكل مستمر لمدة 60 min باستخدام إعدادات الاستحواذ المحددة مسبقاً.
النتائج
يتطلب التنفيذ الناجح لمقايسة نقل طاقة الرنين الفلوري المحددة زمنياً (TR-FRET) تحسين نسبة الإنزيم إلى الركيزة. وكما هو موضح في البروتوكول، يمكن تحقيق ذلك عن طريق معايرة كلا المكونين. في هذه الدراسة، تم اختبار تركيزات من الإنزيم تتراوح من 15.6 إلى 500 نانومولار بالاشتراك مع تركيزات من الركيزة تتراوح من 12.5 إلى 50 µMتضمنت الدراسة تفاعلات ضابطة تفتقر إما إلى المادة المتفاعلة أو الإنزيم. وفي تجربة منفصلة، تم تحديد ثابت ميكايليس-مينتن (KM) ليكون 29.2 ± 6.1 µM (الشكل التكميلي 1).
تظهر النتائج أن تركيز الإنزيم هو الذي يحدد بشكل أساسي معدل تحول الركيزة، بينما يؤثر تركيز الركيزة بشكل رئيسي على شدة إشارة الفلورسنت. وقد أدى زيادة تركيزات الركيزة إلى الحصول على إشارات فلورسنت أولية أعلى (t = 0). على سبيل المثال، تراوح الفلورسنت الأساسي من 400 إلى 500 RFU تقريبًا في الشكل 2A، بينما أنتجت تركيزات الركيزة المنخفضة قيم فلورسنت أساسية أقل (الشكل 2B،C). وفي حالة غياب الركيزة (الشكل 2D)، تم الكشف فقط عن الفلورسنت الخلفي، والذي يكون عادةً أقل من 20 RFU.
أدت زيادة تركيزات الإنزيم إلى زيادة معدل تحويل الركيزة وتحسين نسب الإشارة إلى الضوضاء (الشكل 2A). وعند أعلى تركيز للإنزيم، اقترب التفاعل من مرحلة الثبات بعد حوالي 50 min، مما يشير إلى تحويل شبه كامل للركيزة. وقد تم الوصول إلى مرحلة الثبات في وقت أبكر عند تركيزات الركيزة المنخفضة، وفي وقت لاحق عند تركيزات الركيزة الأعلى. وفي المقابل، لم تصل تركيزات الإنزيم المنخفضة إلى حالة التشبع خلال فترة القياس البالغة 60 min، وحافظت على زيادة خطية تقريبًا في الفلورة.
بناءً على هذه الملاحظات، يجب أن تستوفي ظروف المقايسة المثلى المعايير التالية: (1) الحد الأدنى من الفلورة الخلفية في عينة التحكم الخالية من الركيزة؛ (2) فلورة خط أساس مستقرة دون تحول في الركيزة في عينة التحكم الخالية من الإنزيم؛ (3) نسبة إنزيم إلى ركيزة توفر نسبة إشارة إلى ضجيج كافية للتحليل الكمي؛ (4) إشارات فلورية تقترب من حالة الثبات بنهاية فترة القياس. وبناءً على هذه المعايير، تم اختيار تركيز إنزيم قدره 500 nM وتركيز ركيزة قدره 50 µM للتجارب اللاحقة.
لمزيد من توصيف الركيزة الفلورية، تم تحديد معاملات حركية الإنزيم في ظروف المقايسة القياسية باستخدام ثمانية تركيزات من الركيزة (0.39–50 µM) وتركيز إنزيم ثابت (15.9 nM). تم تطبيق سرعات التفاعل الأولية التي تم الحصول عليها من منحنيات تقدم الفلورة على معادلة ميكائيلس-مينتن (الشكل التكميلي 1A,B). وأظهرت الركيزة MI-2822 قيمة KM بلغت 29.2 ± 6.1 µM وقيمة Vmax بلغت 91.8 ± 14.2 RFU/s (n = 7). وباستخدام منحنى معايرة تم إنشاؤه بواسطة 2-amino-N-(3-aminopropyl) benzamide (الشكل التكميلي 1C)، تم حساب kcat بقيمة 0.62 s⁻1، وهو ما يتوافق مع كفاءة تحفيزية (kcat/KM) قدرها 2.12 × 10⁴ s⁻1 M⁻1، وهي أعلى بنحو 30 ضعفاً من تلك المسجلة للركائز الفلورية القائمة على ACC الموصوفة سابقاً. وتشير هذه البيانات الحركية إلى التعرف الفعال على الركيزة بواسطة SARS-CoV-2 Mpro وتدعم ملاءمة MI-2822 للمقايسات الإنزيمية الفلورية الحساسة.
أُجري المقايسة باستخدام 500 nM من Mpro و 50 µM من الركيزة (الشكل 3 و الشكل 4). استُخدم Nirmatrelvir كمثبط مرجعي يستهدف الموقع الحفزي ("المثبط"). وبالتوازي، تم تقييم PROTAC يستهدف Mpro ويرتبط خارج الشق الحفزي ("PROTAC") ورابط مقابل يفتقر إلى جزء الارتباط بإنزيم E3 ligase ("الرابط"). اختُبرت جميع المركبات بثلاثة تركيزات لتقييم التأثيرات المعتمدة على الجرعة.
للتحكم في تأثيرات المذيب، احتوت جميع التفاعلات على تركيز ثابت من DMSO (0.1%). وشملت الضوابط الإضافية ضابطاً يحتوي على المحلول المنظم فقط، وضابطاً خالياً من الإنزيم (وهمي).
من المتوقع أن يقلل المثبط من معدل تحول الركيزة بطريقة تعتمد على الجرعة. وفي المقابل، لا يُتوقع أن يؤثر الـ PROTAC، الذي يرتبط خارج الموقع التحفيزي، بشكل كبير على النشاط الإنزيمي في الظروف الخالية من الخلايا. وبالمثل، من المتوقع أن يكون للمرتبط الضابط تأثير ضئيل أو معدوم على تحول الركيزة. كما يجب أن يحافظ الضابط الصوري على مستوى الفلورية المرجعي طوال التجربة.
واتساقاً مع التوقعات، لم يكن لـ DMSO أي تأثير ملموس على نشاط الإنزيم مقارنة بضابط المحلول المنظم (الشكل 3A–C، باللون الأسود). وبالمثل، حافظ الضابط الصوري على إشارة فلورية أساسية مستقرة طوال التجربة (الشكل 3A–C، باللون الأرجواني).
أحدث المثبط تثبيطاً لنشاط Mpro يعتمد على الجرعة (الشكل 3A، باللون الأحمر). وعند تركيز 10 µM، انخفض معدل تحويل الركيزة بشكل ملحوظ، بينما أدت التراكيز الأقل إلى تثبيط أضعف تدريجياً. وفي المقابل، تسبب كل من PROTAC (الشكل 3B، باللون الأزرق) والرابط (الشكل 3C، باللون الأخضر) في انخفاضات طفيفة فقط في معدل تحويل الركيزة. ونظراً لأن كلا المركبين يتشاركان في نفس الرأس الحربي (warhead)، فإن سلوكهما المتشابه يتفق مع خصائصهما في الارتباط. ومن المهم ملاحظة أن أيًا من المركبين لم يثبط النشاط الإنزيمي بشكل كبير في ظل الظروف المختبرة.
تعتبر هذه النتائج مهمة لتفسير النشاط المضاد للفيروسات القائم على التحلل. ونظراً لأن PROTAC أظهر تثبيطاً ضئيلاً لنشاط إنزيم Mpro، على عكس مثبط الموقع النشط، فإن أي انخفاض في التكاثر الفيروسي يُلاحظ في المقايسات القائمة على الخلايا يعود بشكل أساسي إلى تحلل البروتين بدلاً من التثبيط الإنزيمي المباشر. ويعد هذا التمييز الآلي ضرورياً لإثبات أن النشاط المضاد للفيروسات يتم بوساطة آلية التحلل المستهدفة.
تم تقييم حركية التفاعل بشكل أكبر عن طريق حساب المساحة تحت منحنى الفلورية-الزمن (AUC؛ الشكل 4)، والتي توفر قياساً كمياً لمجموع تحول الركيزة (ΣRFU). وقد حُسبت قيمة AUC كمجموع لقيم RFU عبر جميع النقاط الزمنية المسجلة.
أكد هذا التحليل أن أعلى تركيز للمثبط فقط هو الذي أدى إلى خفض معدل تحول الركيزة بشكل ملحوظ. وقد أحدث الـ PROTAC تأثيراً طفيفاً فقط يعتمد على الجرعة، بينما لم يكن للّيغاند أي تأثير ملموس. وأعطت ضوابط الـ DMSO والمحلول المنظم نتائج متقاربة. كما أظهر الضابط الصوري انخفاضاً طفيفاً في الفلورة بمرور الوقت، ويرجع ذلك على الأرجح إلى التبييض الضوئي للفلوروفور.
تظهر أمثلة تمثيلية للتفاعلات الفاشلة أو غير المثالية في الشكل 5 لتوضيح القيود المحتملة للمقايسة. يعتمد الأداء الموثوق للمقايسة على كل من نقاء وسلامة تحضير الإنزيم، وهو ما يجب التحقق منه قبل تفسير النتائج.
الشكل 5A يوضح تفاعلاً فاشلاً، حيث كانت نقاوة الإنزيم غير كافية أو كان تركيز الإنزيم النشط منخفضاً جداً بحيث لا يدعم تحويل المادة المتفاعلة. لقد تجاوز خط الأساس للفلورة الأولي (t = 0) قيمة 1,000 RFU، وربما يرجع ذلك إلى عدم دقة تحضير المادة المتفاعلة أو وجود شوائب في تحضير الإنزيم تساهم في الفلورة الخلفية. علاوة على ذلك، لم يُلاحظ أي تحويل للمادة المتفاعلة تحت أي ظرف تجريبي، مما يشير إما إلى عدم كفاية الإنزيم النشط أو وجود تلوث تداخل مع النشاط الإنزيمي.
يمكن إدراج ضابط خالي من الركيزة لتحديد ما إذا كان تحضير الإنزيم يساهم في الفلورة الخلفية. ومن الناحية المثالية، يجب أن تظل هذه الإشارة في حدها الأدنى. في المقايسة المحسنة (الشكل 5B)، ظلت الفلورة الخلفية أقل من 20 RFU وكانت متسقة عبر جميع تركيزات الإنزيم، مما يشير إلى أن تحضير الإنزيم ساهم بشكل ضئيل في الإشارة الخلفية. وعلى الرغم من أنه لا يمكن استبعاد التداخل مع النشاط الإنزيمي تماماً، إلا أنه يمكن استبعاد المساهمة الجوهرية لتحضير الإنزيم في ارتفاع الفلورة القاعدية.
يعد تحضير المادة الخاضعة للتفاعل محدداً حاسماً آخر لأداء المقايسة. في هذه الدراسة، تم إذابة الركيزة الببتيدية في محلول منظم بروتيني للحفاظ على ظروف مقايسة متسقة. وخلال مرحلة تحسين المقايسة، تم تقييم ذوبانية الركيزة في محلولين منظمين للبروتين وفي الماء المقطر. وقد أدى إذابة الركيزة في الماء المقطر إلى تقليل ذوبانيتها وتحفيز تجمع الببتيدات. ومع ذوبان هذه التجمعات تدريجياً أثناء المقايسة، أدت إلى زيادات مفاجئة في الفلورة، مما نتج عنه تقديرات غير دقيقة لتركيزات الركيزة الفعالة (الشكل 5C، باللون الأحمر). لذا، استخدم مذيباً يحافظ على الذوبانية الكاملة للركيزة مع الحفاظ على نشاط الإنزيم.
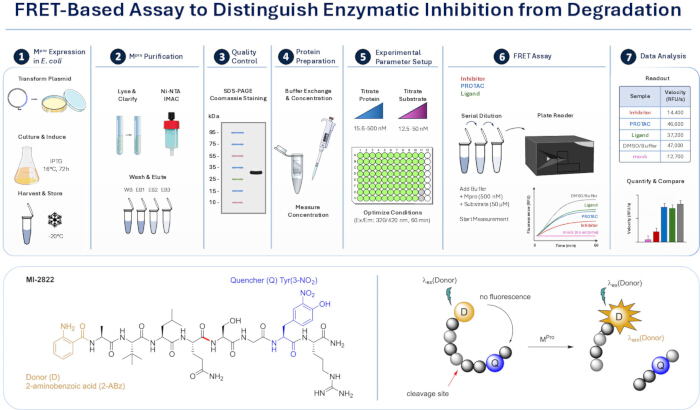
الشكل 1: نظرة عامة على التجربة القائمة على FRET ومبدأ المقايسة. يوضح اللوح العلوي سير العمل التجريبي، بما في ذلك تعبير Mpro المؤتلف في E. coli، والتنقية باستخدام كروماتوغرافيا الألفة للمعادن المثبتة، ومراقبة الجودة، وتحضير البروتين، وتحسين ظروف المقايسة، يليه مقايسة FRET وتحليل البيانات. يصور اللوح السفلي مبدأ المقايسة: يتم شطر ركيزة ببتيدية فلورية مخمدة بواسطة Mpro، مما يؤدي إلى فصل الفلوروفور عن المخمد وزيادة مقابلة في إشارة الفلورة. يتيح هذا الإعداد المراقبة الحركية للنشاط الإنزيمي ومقارنة الظروف المعالجة بالمثبطات، أو PROTAC، أو الربيطات. الاختصارات: Mpro = البروتياز الرئيسي، E. coli = Escherichia coli، FRET = نقل طاقة الرنين الفلوري، PROTAC = خيمر استهداف تحلل البروتين. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
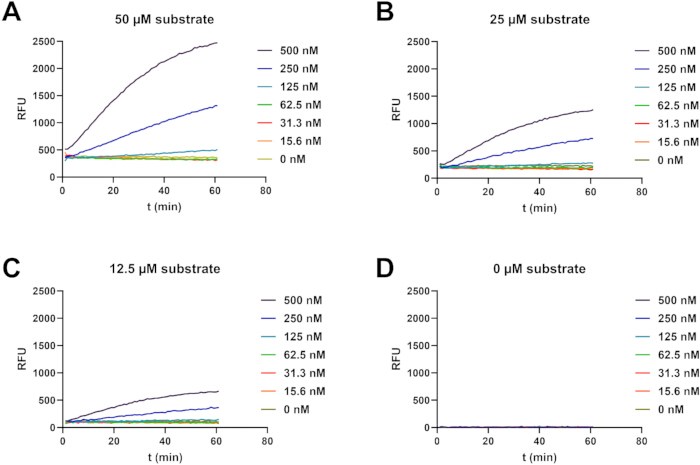
الشكل 2: معايرة البروتين والركيزة. في حجم تفاعل إجمالي قدره 150 µL، تم دمج تخفيف تسلسلي من Mpro المُنقى (15.6–500 nM) مع (A) 50 µM، أو (B) 25 µM، أو (C) 12.5 µM من الركيزة، أو (D) محلول منظم (ضابط بدون ركيزة). أُجريت التفاعلات في أطباق سوداء ذات قاع مسطح مكونة من 96 بئراً وتمت مراقبتها باستخدام قارئ أطباق ميكروية متعدد الأنماط. سُجلت الفلورة كل 60 s لمدة 60 min (λex 320 nm, λem 420 nm). تم رسم RFU مقابل الوقت. الاختصارات: Mpro = البروتياز الرئيسي، λex = طول موجة الإثارة، λem = طول موجة الانبعاث، RFU = وحدات الفلورة النسبية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
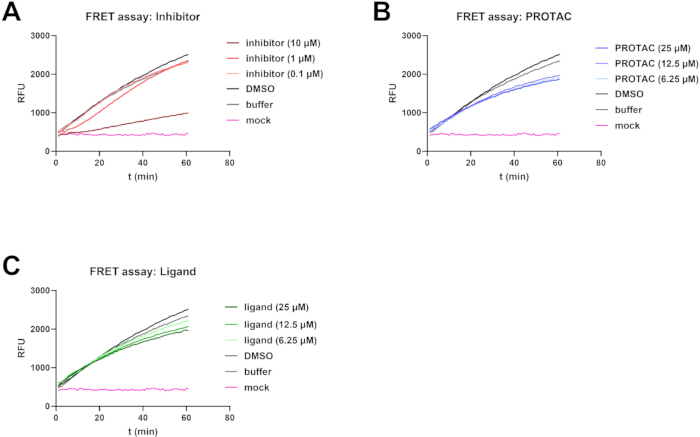
الشكل 3: TR-FRET في وجود مثبط Mpro وPROTAC ورابط. في حجم تفاعل إجمالي قدره 150 µL، تم تحضين 500 nM من Mpro المُنقى مع 50 µM من الركيزة في وجود تخفيفات متسلسلة من (A) مثبط الموقع النشط nirmatrelvir، أو (B) PROTAC يستهدف Mpro، أو (C) الرابط المقابل الذي يفتقر إلى جزء الارتباط بإنزيم E3 ligase. أُجريت التفاعلات في أطباق سوداء ذات قاع مسطح تحتوي على 96 بئراً وتمت مراقبتها باستخدام قارئ أطباق ميكروي متعدد الأنماط. سُجل الفلورية كل 60 s لمدة 60 min (λex 320 nm, λem 420 nm). تم رسم قيم RFU بمرور الوقت. الاختصارات: Mpro = البروتياز الرئيسي، PROTAC = خيمر استهداف تحلل البروتين، λex = طول موجة الاستثارة، λem = طول موجة الانبعاث. RFU = وحدات الفلورية النسبية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
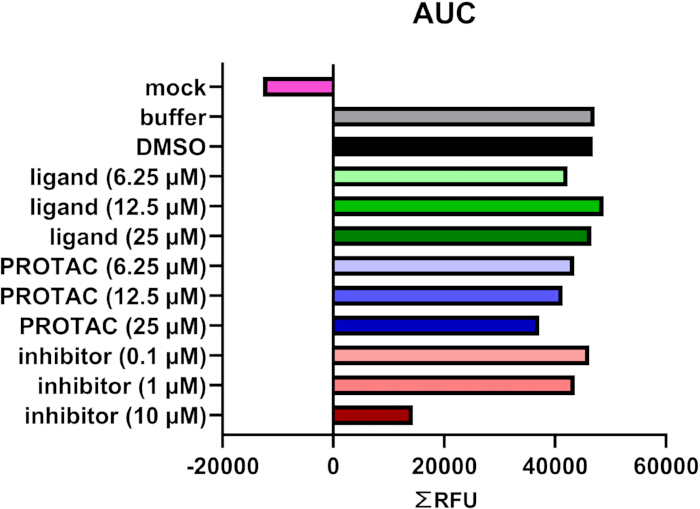
الشكل 4: تحليل الحركية المتكاملة لمقايسة TR-FRET. يتم التعبير عن الحركية المتكاملة المشتقة من AUC (الموضحة في الشكل 3) على شكل ΣRFU، والتي تدمج جميع قيم RFUs على مدار 60 min. وتعمل قيم AUC على قياس معدل دوران الركيزة وتسمح بالمقارنة المباشرة بين الظروف المعالجة بالمثبط، وPROTAC، والليجاند. الاختصارات: AUC = المساحة تحت المنحنى، RFU = وحدات الفلورة النسبية، PROTAC = خيمر استهداف التحلل البروتيني. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
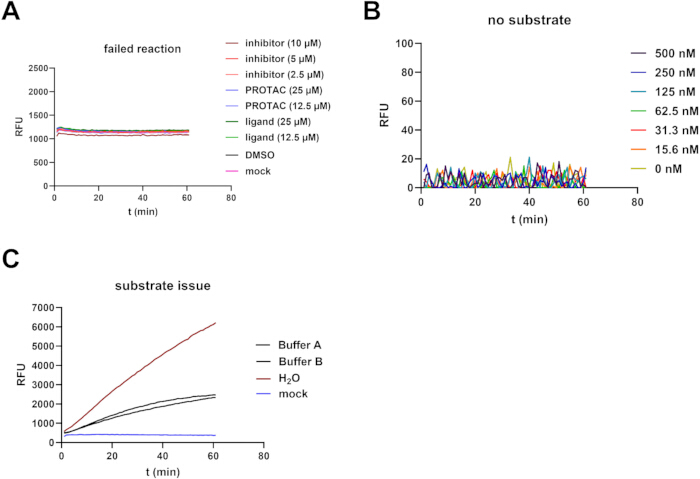
الشكل 5: نتائج نموذجية لتفاعلات فاشلة وتجارب ضابطة. (A) مقايسة TR-FRET أُجريت كما هو موضح في الشكل 3، بما في ذلك التخفيفات التسلسلية للمثبط، وPROTAC، والربيطة. تظهر البيانات تفاعلاً فاشلاً يتميز بارتفاع الفلورة الأساسية وغياب تحول الركيزة في جميع الظروف. (B) ضابط بدون ركيزة أُجري كما هو موضح في الشكل 2D. تظل الفلورة الخلفية منخفضة (<20 RFU) وثابتة عبر تركيزات الإنزيم. (C) مقايسة TR-FRET أُجريت كما هو موضح في الشكل 3 باستخدام ركيزة مذابة في مذيبات مختلفة (منظمات البروتين A وB أو dH₂O). تؤدي ضعف الذوبانية في dH₂O إلى تجمع الببتيد، مما يؤدي إلى زيادات غير منتظمة في الفلورة بسبب تأخر ذوبان الركيزة وعدم دقة التركيزات الفعالة. الاختصارات: TR-FRET = نقل طاقة الرنين الفلوري المحلول زمنياً، PROTAC = خيمر استهداف تحلل البروتين. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الشكل التكميلي 1: تحليل حركية الإنزيم للبروتياز الرئيسي لفيروس SARS-CoV-2 (بتركيز 15.9 nM في المقايسة) باستخدام الركيزة MI-2822. (A) منحنيات التقدم عند تركيزات ركيزة تبلغ 50 µM (باللون الأسود)، و25 µM (بالأخضر الفاتح)، و12.5 µM (بالأزرق)، و6.25 µM (بالوردي)، و3.13 µM (بالأخضر الداكن)، و1.56 µM (بالأزرق الداكن)، و0.78 µM (بالبنفسجي)، و0.39 µM (بالأرجواني). (B) وفر ملاءمة السرعات لمعادلة Michaelis-Menten قيمة KM تبلغ 29.2 ± 6.1 µM وقيمة Vmax تبلغ 91.8 ± 14.2 RFU/s (n = 7). (C) استُخدم منحنى معايرة باستخدام الفلوروفور 2-amino-N-(3-aminopropyl) benzamide لحساب kcat بقيمة 0.62 s-1 وقيمة kcat/KM تبلغ 2.12 × 10⁴ s-1 M-1.يرجى النقر هنا لتحميل هذا الملف.
الملف التكميلي 1: تخليق 2-amino-N-(3-aminopropyl) benzamide. الإجراء التخليقي المفصل والتوصيف التحليلي لمركب 2-amino-N-(3-aminopropyl) benzamide، وهو مشتق أميد قابل للذوبان في الماء من الفلوروفور 2-aminobenzamide (2-Abz) المستخدم في معايرة الفلورسنس في مقايسة حركية الإنزيم.يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
نقدم في هذا العمل مقايسة تعتمد على نقل طاقة الرنين الفلوريسنتيي المحددة زمنياً (TR-FRET) لتقييم النشاط الإنزيمي لـ SARS-CoV-2 Mpro في وجود المثبطات، والكيميرات الموجهة لتحلل البروتينات (PROTACs)، والرابطات المقابلة لها. وقد تم تطوير هذه المقايسة للتمييز وظيفياً بين تأثيرات PROTAC الناتجة حصرياً عن تحلل البروتين وتلك الناتجة عن التثبيط المباشر للنشاط التحفيزي للإنزيم المستهدف. وباستخدام ركيزة ببتيدية مولدة للفلورية، نوضح أن PROTAC الذي يستهدف Mpro ويرتبط خارج الشق التحفيزي له تأثير طفيف فقط على النشاط الإنزيمي، بينما يقوم مثبط الموقع النشط nirmatrelvir بتثبيط تحويل الركيزة بشكل ملحوظ.
يعتمد الأداء الموثوق للمقايسة على عدة عوامل حاسمة، بما في ذلك نقاء ونشاط الإنزيم المؤتلف، والذوبان الكامل والتحضير الدقيق لركيزة الببتيد، والتحسين الدقيق لتركيزات الإنزيم والركيزة. ومن شأن تدني جودة الإنزيم أو عدم دقة تركيزات الركيزة أن يؤدي إلى زيادة الفلورة الخلفية أو تقليل معدل تحول الركيزة القابل للكشف. علاوة على ذلك، يجب أن تبدأ قياسات نشاط الإنزيم فور إضافة الركيزة، كما يجب موازنة درجة حرارة قارئ الأطباق قبل بدء المقايسة لضمان الحصول على قياسات حركية متسقة وقابلة للتكرار.
يمكن تكييف هذا المقايسة بسهولة مع بروتيازات مختلفة15,16,17,18,19 أو تكوينات تجريبية متنوعة من خلال تحسين تركيزات الإنزيم والركيزة لتحقيق النطاق الديناميكي المطلوب. وتُعد الضوابط المناسبة، بما في ذلك ضوابط "بدون إنزيم"، و"بدون ركيزة"، وضوابط المذيب، ضرورية لتحديد الشوائب المرتبطة بالمقايسة. يجب أن يركز استكشاف الأخطاء وإصلاحها على التمييز بين الشوائب التقنية والتأثيرات الحقيقية على النشاط الإنزيمي من خلال تقييم الفلورة الخلفية، والتأكد من سلامة الإنزيم ونشاطه، واختبار مذيبات بديلة للركيزة عند الضرورة. وبوجه خاص، قد تؤدي الذوبانية غير الكاملة للركيزة إلى التجمع وزيادات غير منتظمة في الفلورة بسبب تأخر ذوبان الركيزة أثناء التفاعل.
بما أن هذا المقايسة تُجرى في نظام كيميائي حيوي خالٍ من الخلايا، فهي لا ترصد العمليات المعتمدة على التحلل، مثل تكوين المعقد الثلاثي، أو عملية إضافة اليوبيكويتين (ubiquitination)، أو التحلل البروتيزومي. وبناءً على ذلك، فإنها تقيس تحديداً مساهمة التثبيط الإنزيمي المباشر دون تقييم كفاءة التحلل. بالإضافة إلى ذلك، قد تؤثر الشوائب الناتجة عن المركبات، بما في ذلك الفلورة الذاتية، أو إخماد الفلورة، أو التداخل مع انشطار الركيزة، على نتائج المقايسة. ويجب معالجة هذه العوامل المربكة المحتملة من خلال إدراج تجارب ضابطة مناسبة، بما في ذلك الضوابط التي تحتوي على المركب فقط، أو بدون إنزيم، أو بدون ركيزة، أو ضوابط المذيب. كما يتطلب التفسير الدقيق للنتائج الحفاظ على ظروف المقايسة ضمن النطاق الخطي لحركية الإنزيم.
بالمقارنة مع مقايسات التحلل القائمة على الخلايا، يوفر مقايسة TR-FRET المقدمة قياساً مباشراً وكمياً للنشاط الإنزيمي تحت ظروف كيميائية حيوية محددة بدقة. وتدمج المقايسات الخلوية التي تقيم النشاط المضاد للفيروسات لمركبات PROTACs عمليات بيولوجية متعددة، بما في ذلك تحلل الهدف والنتائج المترتبة على ذلك مثل ضعف معالجة البروتين السكري الفيروسي المتعدد، وانخفاض التكاثر الفيروسي، وتغير تعبير البروتين الفيروسي. ورغم أن هذه المقايسات توفر معلومات قيمة فيما يتعلق بالفعالية العامة المضادة للفيروسات، إلا أنها عموماً لا تستطيع التمييز ما إذا كانت التأثيرات الملحوظة ناتجة عن التثبيط المباشر للنشاط الإنزيمي أو عن تحلل البروتين المستهدف10,12,13,14. وفي المقابل، تتيح مقايسة TR-FRET تحليلاً ميكانيكياً دقيقاً على المستوى الإنزيمي، وبالتالي فهي تعمل كمكمل مهم للمنهجيات الكيميائية الحيوية والخلوية المعتمدة.
يعتبر هذا المقايسة ذات قيمة خاصة في تطوير وتحسين جزيئات PROTACs وغيرها من الجزيئات ثنائية الوظيفة التي تستهدف البروتينات النشطة إنزيميًا. تدمج العديد من مواد التحلل المضادة للفيروسات رؤوسًا حربية مشتقة من مثبطات الموقع النشط، وبذلك تجمع بين التثبيط الإنزيمي المباشر وتحلل البروتين المستهدف10,12,13,14. ومع ذلك، لا تمتلك جميع هياكل الليجاند نشاطًا تثبيطيًا ذاتيًا، وقد تؤدي التعديلات الهيكلية، مثل ربط الرابط (linker)، إلى تغيير ألفة الارتباط أو نمط الارتباط20. لذا، تتيح هذه المقايسة المقدمة تقييمًا كميًا لمساهمة التثبيط الإنزيمي المباشر في النشاط الإجمالي المضاد للفيروسات لـ PROTAC. وبالإضافة إلى Mpro الخاص بفيروس SARS-CoV-2، فإن هذه الطريقة قابلة للتطبيق على نطاق واسع على البروتيازات الفيروسية والأهداف الإنزيمية الأخرى، وقد تسهل التطوير العقلاني لمواد التحلل ذات السمات الميكانيكية المحددة بدقة. والأهم من ذلك، ومن خلال إثبات أن PROTAC الذي تمت دراسته يحفز تثبيطًا مباشرًا ضئيلًا فقط لنشاط Mpro in vitro، توفر مقايسة TR-FRET هذه تحققًا ميكانيكيًا من أن التأثيرات المضادة للفيروسات الملحوظة في المقايسات اللاحقة القائمة على الخلايا تعود في المقام الأول إلى تحلل البروتين وليس إلى التثبيط الإنزيمي المباشر.
باختصار، يوفر مقايسة TR-FRET المعروضة منصة قوية وحساسة ومتعددة الاستخدامات للتمييز بين التثبيط الإنزيمي المباشر والتأثيرات المرتبطة بالتحلل. وعند دمجها مع مقايسات خلوية تكميلية، فإنها تتيح توصيفاً شاملاً لآليات عمل PROTAC وتدعم التطوير الممنهج للجيل القادم من المواد المحللة للفيروسات.
الإفصاحات
يصرح المؤلفون بعدم وجود أي تضارب في المصالح.
شكر وتقدير
نتوجه بالشكر إلى لورا بونت، وجوستوس هابي، ودومينيك هاجين، ولوكاس بلامبر لدعمهم في تخليق المركبات المستخدمة في هذه الدراسة. كما نشكر كونستانتين بلوخ وميريام روث هايندل على مشورتهما أثناء تأسيس هذا المقايسة. علاوة على ذلك، نتقدم بالشكر إلى مؤسسة يورغن مانشوت، ومركز لووي DRUID، ومؤسسة يونيسينتيا على التمويل.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| أكريلاميد (Rotiphorese® Gel 30) | Carl Roth | 3029.1 | مكون لـ SDS-PAGE |
| بيرسلفات الأمونيوم (APS) | Biorad | 1610700 | مكون لـ SDS-PAGE |
| السلالة البكتيرية BL21 Rosetta2 | معهد لا جولا للمناعة، سان دييغو، الولايات المتحدة الأمريكية | N/A | مقدمة من الشركاء |
| قارئ BioTek Synergy H1 متعدد الأنماط | Agilent Technologies | Synergy H1 | لقراءة TR-FRET |
| أطباق FluoroNunc MaxiSorp سوداء ذات 96 بئراً | Thermo-Fisher Scientific | 437111 | التأكد من استخدام الأطباق السوداء |
| برومفينول بلو | Sigma-Aldrich | 1.08122 | مكون للمحلول المنظم للعينات |
| جهاز طرد مركزي 5430-R (سطحي) | Eppendorf | 5430-R | بخاصية التبريد |
| جهاز طرد مركزي Avanti J-25 | Beckman Coulter | 6594 | جهاز طرد مركزي عالي السرعة |
| جهاز طرد مركزي Avanti J-26 XP | Beckman Coulter | JXN-26 | جهاز طرد مركزي عالي السرعة |
| ثنائي ميثيل سلفوكسيد (DMSO) | Carl Roth | A994.1 | مذيب |
| فوسفات هيدروجين ثنائي الصوديوم (Na2HPO4) | Carl Roth | X987.2 | مكون للمحلول المنظم |
| إيثانول (ROTIPURAN® ≥ 99,8 %، p.a.) | Carl Roth | 9065.1 | لـ IMAC |
| جليسرول | Carl Roth | 6967.1 | للمخزون البكتيري |
| مضخة 연دية Hei-FLOW Core 120 | Heidolph | 523-50010-00 | لـ IMAC |
| جهاز Heraeus Multifuge 3S-R | Heraeus | 2395 | بدون خاصية التبريد |
| أعمدة HisTrap® FF لتنقية البروتينات الموسومة بالهستيدين الخام (5 mL) | Cytiva | 17528601 | لـ IMAC |
| إيميدازول | Carl Roth | 3899.3 | لشطف البروتين أثناء IMAC |
| مقياس pH من نوع InoLab pH/ION 7320 BNC | WTW | 1GA330 | لمعايرة pH |
| إيزوبروبيل-β-D-ثيوجالاكتوبيرانوسيد (IPTG) | Carl Roth | CN08.1 | لتحفيز التعبير الجيني |
| كبريتات الكاناميسين | Sigma-Aldrich | PHR1487 | مضاد حيوي |
| محرك مغناطيسي (مسخن) | Heidolph | 7402 | لتحضير المحاليل المنظمة |
| مركابتويثانول | Sigma-Aldrich | M6250-10ML | مكون للمحلول المنظم للعينات |
| أطباق MultiScreen® ذات 96 بئراً | MilliporeSigma | MSSBNFX40 | للتخفيفات |
| N,N,N',N'-تتراميثيل إيثيلين ثنائي الأمين (TEMED) | Fisher Scientific | 11424214 | مكون لـ SDS-PAGE |
| مقياس الضوء Nanodrop ND1000 | Peqlab | 7533 | تحديد تركيز البروتين |
| ناقل البلازميد pET28a(+) | Addgene | 69864-3 | ناقل تعبير |
| كلوريد البوتاسيوم (KCl) | Carl Roth | 1LCY.1 | مكون للمحلول المنظم |
| فوسفات هيدروجين البوتاسيوم (KH2PO4) | Carl Roth | 3904.1 | مكون للمحلول المنظم |
| Protein Detective - صبغة بروتين Coomassie فائقة السرعة (1 L) | BIOZOL | BZL-PD1 | لتصبيغ البروتين بشكل سريع وسهل |
| الدوار JA 25.50 و JLA 8.1000 | Beckmann Coulter | 363055, 363688 | دوارات عالية السرعة |
| قطب pH من نوع SenTix® 81 | WTW | 103642 | لمعايرة pH |
| كلوريد الصوديوم (NaCl) | Carl Roth | 3957.1 | مكون للمحلول المنظم والوسط الغذائي |
| دوديسيل كبريتات الصوديوم (SDS) | Carl Roth | 0183.1 | مكون لـ SDS-PAGE وللمحلول المنظم للعينات |
| جهاز سونيفايير Branson Ultrasonics S-450 | BANDELIN electronic | 10656933 | للسونكة |
| رأس مضخة أحادي القناة SP standard (wt 1.6 mm) | Heidolph | 523-43010-00 | لـ IMAC |
| قارئ Spark متعدد الأنماط للأطباق الدقيقة | Tecan Group | N/A | مقايسة حركية الإنزيم |
| Tris | Carl Roth | 4855.2 | مكون للمحلول المنظم |
| Triton-X100 | Sigma-Aldrich | X100-100ML | مكون للمحلول المنظم |
| تريبتون/ببتون | Carl Roth | 6681.3 | مكون للوسط الغذائي |
| مستخلص الخميرة | Carl Roth | 2363.2 | مكون للوسط الغذائي |
| طقم تحويل E. coli ذو الكفاءة Z-Competent® ومجموعة محاليل منظمة | Zymo Research | T3001 | للتحويل البكتيري |
المراجع
- Samarasinghe KTG, Crews CM. Targeted protein degradation: A promise for undruggable proteins. Cell Chem Biol. 2021;28(7):934-951.
- Dong G, Ding Y, He S, Sheng C. Molecular glues for targeted protein degradation: From serendipity to rational discovery. J Med Chem. 2021;64(15):10606-10620.
- Buetow L, Huang DT. Structural insights into the catalysis and regulation of E3 ubiquitin ligases. Nat Rev Mol Cell Biol. 2016;17(10):626-642.
- Li W, et al. Genome-wide and functional annotation of human E3 ubiquitin ligases identifies MULAN, a mitochondrial E3 that regulates the organelle's dynamics and signaling. PLoS One. 2008;3(1).
- Békés M, Langley DR, Crews CM. PROTAC targeted protein degraders: The past is prologue. Nat Rev Drug Discov. 2022;21(3):181-200.
- Crowe C, et al. Mechanism of degrader-targeted protein ubiquitinability. Sci Adv. 2024;10(41).
- Fischer ES, et al. Structure of the DDB1-CRBN E3 ubiquitin ligase in complex with thalidomide. Nature. 2014;512(7512):49-53.
- Teng M, Gray NS. The rise of degrader drugs. Cell Chem Biol. 2023;30(8):864-878.
- Burke MR, Smith AR, Zheng G. Overcoming cancer drug resistance utilizing PROTAC technology. Front Cell Dev Biol. 2022;10.
- de Wispelaere M, et al. Small molecule degraders of the hepatitis C virus protease reduce susceptibility to resistance mutations. Nat Commun. 2019;10(1):3468.
- Paiva SL, Crews CM. Targeted protein degradation: Elements of PROTAC design. Curr Opin Chem Biol. 2019;50:111-119.
- Pan B, et al. Targeted protein degraders of SARS-CoV-2 Mpro are more active than enzymatic inhibition alone with activity against nirmatrelvir-resistant virus. Commun Med. 2025;5(1):140.
- Alugubelli YR, et al. Discovery of first-in-class PROTAC degraders of SARS-CoV-2 main protease. J Med Chem. 2024;67(8):6495-6507.
- Xu Z, et al. Discovery of oseltamivir-based novel PROTACs as degraders targeting neuraminidase to combat H1N1 influenza virus. Cell Insight. 2022;1(3):100030.
- Schwerdtner M, et al. Unveiling the role of TMPRSS2 in the proteolytic activation of pandemic and zoonotic influenza viruses and coronaviruses in human airway cells. Viruses. 2024;16(11):1798.
- Steinmetzer T, Hardes K. The antiviral potential of host protease inhibitors. In: Böttcher-Friebertshäuser E, Garten W, Klenk HD, editors. Activation of Viruses by Host Proteases. Springer; 2018. p. 279-325.
- Böttcher-Friebertshäuser E, et al. Cleavage of influenza virus hemagglutinin by airway proteases TMPRSS2 and HAT differs in subcellular localization and susceptibility to protease inhibitors. J Virol. 2010;84(11):5605-5614.
- Lam van TV, Ivanova T, Lindberg I, Böttcher-Friebertshäuser E, et al. Design, synthesis, and characterization of novel fluorogenic substrates of the proprotein convertases furin, PC1/3, PC2, PC5/6, and PC7. Anal Biochem. 2022;655:114836.
- Hardes K, Hammamy MZ, Steinmetzer T. Synthesis and characterization of novel fluorogenic substrates of coagulation factor XIII-A. Anal Biochem. 2013;442(2):223-230.
- Frost A, O'Connor S, Ciulli A. Allosteric PROTACs: Expanding the horizon of targeted protein degradation. J Am Chem Soc. 2026;148(3):2823-2837.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً