يدمج هذا البروتوكول بين التنبؤ بالأهداف الخاصة بالنواتج الأيضية الميكروبية، والتحليل النسخي للمخاطية المستقيمة، وتفاعلات البروتين-بروتين وإثراء المسارات، والرسو الجزيئي، ومحاكاة الديناميكيات الجزيئية، وتقدير الطاقة الحرة للارتباط باستخدام ميكانيكا الجزيئات/مساحة سطح بويسون-بولتزمان (MM-PBSA)، وذلك لإنشاء قائمة قصيرة مرتبة ومولدة للفرضيات من الجينات المضيفة المرتبطة بالنواتج الأيضية المرشحة، ومعقدات البروتين-الربيطة ذات الأولوية البنيوية للمتابعة التجريبية.
مقالة منهجية
سير عمل حوسبي لتحديد أولويات جينات المضيف المرتبطة بالمستقلبات الميكروبية في متلازمة القولون المتهيج ذات الغلبة الإمساكية
في هذه المقالة
ملخص
الملخص
لا يوجد مسار حوسبي موحد لتحديد أولويات الجينات المضيفة المرتبطة بمستقلبات ميكروبية ومعقدات البروتين-الربيطة بشكل منهجي من قواعد البيانات الكيميائية والجينية والتركيبية المتاحة للعموم. يصف هذا المقال سير عمل مكونًا من ثماني مراحل يستقبل مجموعة محددة من قبل المستخدم من المستقلبات المشتقة من ميكروبات الأمعاء، وينتج قائمة قصيرة مرتبة من الجينات المضيفة المرشحة المرتبطة بالمستقلبات، والمسارات البيولوجية المثرية، ومعقدات البروتين-الربيطة ذات الأولوية التركيبية للمتابعة التجريبية. يدمج هذا المسار ما يلي: (i) التنميط الكيميائي المعلوماتي للمستقلبات؛ (ii) التنبؤ بالأهداف المرشحة عبر قواعد بيانات متعددة باستخدام أداة التنبؤ بالأهداف القائمة على الربيطة وتفاعل البروتين-الكيميائي وبرنامج للرسو الجزيئي؛ (iii) تحليل التعبير الجيني التفاضلي لبيانات الترانسكريبتوم المتاحة للعموم؛ (iv) تداخل الجينات ذات التعبير التفاضلي مع الأهداف؛ (v) بناء شبكة تفاعل البروتين-البروتين وإثراء المسارات؛ (vi) الرسو الجزيئي باستخدام برنامج رسو جزيئي؛ (vii) محاكاة الديناميكا الجزيئية لمدة 200 ns باستخدام محرك ديناميكا جزيئية مع مجال قوة بروتيني مستخدم في محاكاة الديناميكا الجزيئية؛ و (viii) تقدير الطاقة الحرة للارتباط بطريقة MM-PBSA. كمثال تطبيقي، تمت معالجة تسعة مستقلبات مشتقة من ميكروبات الأمعاء أو معدلة ميكروبيًا تمثل الأحماض الدهنية قصيرة السلسلة، والأحماض الصفراوية، والمستقلبات المشتقة من التريبتوفان، واليوروليثين A، باستخدام مجموعة بيانات الترانسكريبتوم لغشاء المستقيم في حالات IBS-C المتاحة للعموم GSE36701. رتب سير العمل 17 جينًا فريدًا متوقعًا مرتبطًا بالمستقلبات كانت ذات تعبير تفاضلي في هذه المجموعة من البيانات. وقد حددت تحليلات الرسو، ومحاكاة الديناميكا الجزيئية، و MM-PBSA الأولوية التركيبية لخمسة معقدات من المستقلب-البروتين: lithocholic acid-VDR، و lithocholic acid-NR1H4/FXR، و ursodeoxycholic acid-NR1H4/FXR، و tryptamine-HTR2A (تمت محاكاته في طبقة ليبيدية مزدوجة صريحة من 1-Palmitoyl-2-oleoyl-sn-glycero-3-phosphocholine (POPC))، و urolithin A-CASP3. صُمم هذا البروتوكول ليكون قابلاً للتكيف مع مجموعات مستقلبات أخرى، ومجموعات بيانات ترانسكريبتوم لأمراض مختلفة، وفئات أهداف متنوعة؛ وتعتبر جميع المخرجات تنبؤات حوسبية لتوليد الفرضيات تتطلب تكرارًا مستقلًا لبيانات الترانسكريبتوم، وتحققًا على مستوى البروتين، ومقايسات استجابة الربيطة الوظيفية قبل التوصل إلى استنتاجات سببية أو علاجية.
المقدمة
يُعد متلازمة القولون المتهيج المصاحب للإمساك (IBS-C) اضطرابًا وظيفيًا شائعًا في الجهاز الهضمي، يتميز بآلام متكررة في البطن، وتغير في عادات التبرز، وانتفاخ، وإمساك، حيث تُقدر نسبة انتشارها عالميًا بنحو 10–15% من عامة السكان1,2. ويمكن للعلاجات الدوائية الحالية، بما في ذلك المحفزات الإفرازية، ومحفزات الحركة، ومضادات التشنج، أن تحسن أعراضًا فردية لدى مجموعة فرعية من المرضى؛ ومع ذلك، تظل الاستجابة للعلاج متباينة ونادرًا ما يتم تحقيق هجوع مستدام للمرض، مما يعكس البيولوجيا المرضية المعقدة ومتعددة العوامل لهذه الحالة1,3,4. لذا، ثمة حاجة إلى فهم ميكانيكي أكثر اكتمالاً لكيفية نقل إشارات الميكروبات المعوية على مستوى المخاطية لصياغة فرضيات قابلة للاختبار لأهداف علاجية جديدة.
تساهم ميكروبات الأمعاء في الحفاظ على التوازن الداخلي للجهاز الهضمي السفلي من خلال إنتاج والتحويل الحيوي لنواتج أيض متنوعة كيميائياً، بما في ذلك الأحماض الدهنية قصيرة السلسلة (SCFAs)، وأحماض الصفراء الثانوية، والمركبات المشتقة من التريبتوفان، ونواتج أيض البوليفينول مثل اليوروليثينات5,6,7,8. وتتواصل هذه الجزيئات مع خلايا المضيف عبر مجموعة واسعة وغير محددة بالكامل من الأهداف الجزيئية التي تتجاوز بمراحل مستقبلات الغشاء الكلاسيكية المستشعرة لنواتج الأيض لتشمل المستقبلات النووية، والإنزيمات السيتوسولية، والبروتينات المعدلة للهيستون، وسلائف الهرمونات الببتيدية، وبروتينات الإشارات داخل الخلوية9. وقد تم توثيق تغيرات في تكوين المجتمع الميكروبي المعوي وملفات نواتج الأيض لدى المرضى الذين يعانون من متلازمة القولون المتهيج (IBS)، مما يوفر مبرراً بيولوجياً للبحث فيما إذا كانت جينات المضيف المرتبطة بالاستجابة لنواتج الأيض الميكروبية تعاني من اضطرابات نسخية في مخاطية المستقيم لدى المصابين بـ IBS-C10.
تم تحديد لوحة المستقلبات التسعة مسبقاً لتوفير مجموعة مدمجة ومتنوعة كيميائياً وقابلة للتفسير بيولوجياً من الجزيئات الصغيرة المشتقة من ميكروبات الأمعاء أو المعدلة بواسطتها. استند الاختيار إلى خمسة معايير: تمثيل الفئات الرئيسية للمستقلبات الميكروبية المشاركة في إشارات التواصل بين المضيف والميكروبات؛ التعرض المعروف أو المحتمل للمخاطية المعوية البعيدة؛ توافر معرفات PubChem وبنى قياسية غير غامضة؛ الحجم الجزيئي والقابلية البنيوية للتنبؤ بالأهداف القائمة على الربائط والرسو الجزيئي؛ والمنطقية المسبقة للإشارات المتعلقة بالخلايا الظهارية، أو الجهاز العصبي المناعي، أو الخلايا المعوية الصماء، أو المستقبلات النووية، أو الحركية في حالة متلازمة القولون المتهيج مع الإمساك (IBS-C). شملت اللوحة المختارة butyrate و propionate كأحماض دهنية قصيرة السلسلة (SCFAs)؛ و chenodeoxycholic acid و lithocholic acid و ursodeoxycholic acid كأحماض صفراوية؛ و tryptamine و indole-3-propionic acid و indole-3-lactic acid كمستقلبات مشتقة من التريبتوفان؛ و urolithin A كمستقلب بوليفينول مشتق من ميكروبات الأمعاء5,6,7,8,9,10.
بحثت معظم الدراسات الحسابية والتجريبية السابقة في أزواج منفردة من المستقلب والمستقبل أو المستقلب والإنزيم بشكل منعزل، وهو نهج لا يستوعب الطبيعة الموزعة والتقاربية لإشارات المستقلبات الميكروبية عبر مسارات المضيف9,11. ويمنح دمج عدة مراحل تحليلية قوة تصفية تعزز بعضها بعضاً، وهو ما لا يمكن لأي مرحلة مفردة توفيره بشكل مستقل. إذ يؤدي التنبؤ الحسابي بالأهداف مقابل قواعد بيانات منسقة إلى الحصول على مجموعة واسعة من البروتينات المرشحة في المضيف لكل مستقلب. ثم يعمل التقاطع مع البيانات الترانسكريبتومية ذات الصلة بالمرض على تصفية هذه المجموعة بشكل كبير، مع الاحتفاظ فقط بالمرشحين الذين تتغير نسخهم الترانسكريبتية في سياق المرض. بعد ذلك، تعمل تحليلات إثراء المسارات وشبكات التفاعل بين البروتينات على ربط قائمة المرشحين المختصرة بوحدات بيولوجية معروفة. ويوفر الالتحام الجزيئي تقييماً حسابياً أولياً لتكامل جيب الارتباط لكل معقد مرشح، كما يوفر محاكاة إضافية للديناميكا الجزيئية (MD) لمدة 200 ns مع تحليل تفكيك الطاقة الحرة للارتباط بطريقة MM-PBSA بُعداً ثيرموديناميكياً دقيقاً زمنياً لتحديد الأولويات الهيكلية، وهو أمر غير متاح من خلال درجات الالتحام وحدها. إن تنفيذ كل خطوة بشكل مستقل، دون تكامل منهجي وتصفية متسلسلة، سيؤدي إلى قوائم مرشحين واسعة جداً بحيث يصعب التعامل معها تجريبياً، وسيفشل في الكشف عن بنية المسارات التقاربية.
في سياق هذا البروتوكول بالكامل، نعني بمصطلح "الجين المرتبط بالمستقلبات" (MAG) جيناً بشرياً تم ترشيح ناتجه البروتيني كهدف جزيئي مفترض لواحد أو أكثر من المستقلبات المشتقة من ميكروبات الأمعاء بواسطة قاعدة بيانات تنبؤ حاسوبية منقحة واحدة على الأقل، ويكون النسخ الخاص به معبراً عنه بشكل تفاضلي في مجموعة البيانات النسخية ذات الصلة بالمرض والمستخدمة لتوضيح سير العمل. يتضمن هذا التعريف الإجرائي عمداً المستقبلات الغشائية بالإضافة إلى المستقبلات النووية، والإنزيمات السيتوسولية، وبروتينات الإشارة، وسلائف الهرمونات الببتيدية، وغيرها من البروتينات داخل الخلوية. لا يعد تعيين MAG دليلاً تجريبياً على أن المستقلب يرتبط، أو يشكل معقداً بروتين-لجين، أو ينشط مستقبلاً، أو يغير من وفرة البروتين، أو يسبب المرض، بل هو ترشيح مشتق حاسوبياً لتوليد الفرضيات يتطلب تحققاً تجريبياً.
يصف هذا البروتوكول سير العمل الحوسبي الكامل المكون من ثماني مراحل (الشكل 1) بتفاصيل تشغيلية كافية لتمكين التكرار المستقل، والتكييف مع لوحات استقلابية أخرى أو مجموعات بيانات مرضية، والتوسع ليشمل سياقات أخرى من التفاعل بين المضيف والميكروبات. تم تحديد نطاق سير العمل صراحةً كإطار عمل لتوليد الفرضيات وتحديد الأولويات الهيكلية، بحيث يعمل حصرياً على الموارد الهيكلية والأوميكس المتاحة علناً، ولا يستنتج تغيرات في تركيزات المستقلبات، أو حالات تنشيط المستقبلات، أو تغيرات التعبير البروتيني، أو نشاط الإشارات النهائية، أو الأهمية السريرية من المخرجات الحوسبية وحدها. نقوم هنا بتوضيح البروتوكول كمثال تطبيقي باستخدام تسعة من المستقلبات المشتقة من ميكروبات الأمعاء أو المعدلة بواسطتها، ومجموعة بيانات ترانسكريبتوم المخاطية الشرجية العامة لمرض IBS-C رقم GSE36701، وذلك بهدف تحديد MAGs وترتيب أولويات معقدات المستقلب-بروتين للمتابعة التجريبية اللاحقة.
البروتوكول
استخدم التحليل فقط بيانات ترانسكريبتومية مجهولة المصدر ومتاحة للعموم من GSE36701، بالإضافة إلى قواعد بيانات كيميائية وبروتينية وهيكلية متاحة للعموم. تم الدخول إلى قواعد البيانات هذه في الفترة ما بين يناير ومايو 2026. وأي تاريخ دخول لاحق تم توثيقه في جدول المواد المنفصل.
1. تصميم الدراسة، ومتطلبات الأجهزة والبرمجيات
- حدد سير العمل قبل بدء التحليل. استخدم ثماني مراحل: اختيار المستقلبات، والتنبؤ بالأهداف، وتحليل التعبير التفاضلي، وتداخل الجينات ذات التعبير التفاضلي (DEG) مع الأهداف، وتفاعل البروتين-بروتين (PPI)/إثراء المسارات، والالتحام الجزيئي، ومحاكاة الديناميكا الجزيئية (MD)، وتقدير MM-PBSA.
- سجل أن كل من الالتحام الجزيئي، والديناميكا الجزيئية (MD)، وMM-PBSA هي أدوات لتحديد الأولويات الهيكلية فقط. لا تفسر هذه المخرجات كأدلة تجريبية على الارتباط، أو تنشيط المستقبلات، أو تغير وفرة البروتين، أو الفعالية العلاجية، أو مسببات المرض.
- تحقق من أجهزة الحوسبة قبل تشغيل محاكاة MD. استخدم نظام تشغيل Linux بمعمارية 64-bit، ووحدة معالجة مركزية (CPU) بـ 6 أنوية أو أفضل، ومنصة تسريع GPU بذاكرة VRAM تبلغ ≥8 GB، أو منصة تسريع GPU مكافئة بذاكرة VRAM تبلغ ≥8 GB، وبحد أدنى 32 GB من ذاكرة الوصول العشوائي (RAM)، وما لا يقل عن 200 GB من مساحة التخزين الحرة لكل نظام MD.
- سجل البرمجيات الأساسية: محرك ديناميكا جزيئية، وبرنامج للالتحام الجزيئي لربط المستقلبات بالبروتينات المستهدفة، وأداة لتحويل تنسيقات الملفات الكيميائية12، وبرنامج لتوليد الربائط ثلاثية الأبعاد، وأداة لتحضير الربائط، ومجموعة أدوات لتحضير مدخلات الالتحام، وبرنامج للالتحام الجزيئي لربط المستقلبات بالبروتينات المستهدفة، وبيئة برمجة عامة الأغراض، وبيئة حوسبة إحصائية مع إطار عمل لبرمجيات المعلوماتية الحيوية، وحزمة لتحليل التعبير الجيني التفاضلي.
- سجل أدوات التحليل الهيكلي: أداة بناء أنظمة الغشاء القائمة على الويب، وخدمة تحديد بارامترات الربائط المتوافقة مع CHARMM، وأداة حساب طاقة الارتباط باستخدام الميكانيكا الجزيئية/المذيب المستمر، ومكتبة تحويل التوبولوجيا والبارامترات الجزيئية، وبرنامج تصور جزيئي ثلاثي الأبعاد، وأداة للتصور الجزيئي ومخططات التفاعل ثنائية الأبعاد لعام 2021 (راجع جدول المواد للحصول على روابط التنزيل ومعلومات الإصدار).
- سجل المعرفات الدقيقة لحقل القوة البروتينية المستخدم في محاكاة الديناميكا الجزيئية، وCGenFF، وCHARMM-GUI، وإطار عمل R/المعلوماتية الحيوية، ومعرفات إصدار أداة حساب طاقة الارتباط باستخدام الميكانيكا الجزيئية/المذيب المستمر في جدول المواد/ملف البيئة. حدد المعرفات الغائبة بعبارة "غير قابلة للاسترداد"؛ ولا تقم باستنتاجها.
2. اختيار المستقلبات والتوصيف الكيميائي المعلوماتي
- حدد مجموعة المستقلبات قبل البدء في التنبؤ بالأهداف. تشمل هذه المجموعة: butyrate (PubChem CID: 264)، وpropionate (CID: 1032)، وchenodeoxycholic acid (CID: 10133)، وlithocholic acid (CID: 9903)، وursodeoxycholic acid (CID: 31401)، وtryptamine (CID: 1150)، وindole-3-propionic acid (CID: 3744)، وindole-3-lactic acid (CID: 92904)، وurolithin A (CID: 5488186).
- استخرج نظام إدخال السطور الجزيئية المبسط (SMILES) المعياري ومعرف PubChem CID لكل مستقلب. تحقق من المترادفات والبنى المكررة قبل التنبؤ بالأهداف. قم بتخزين المعرفات النهائية في ورقة المستقلبات الرئيسية.
- أرسل سلاسل SMILES المعيارية إلى أداة الويب الخاصة بالتنبؤ بالخصائص الفيزيائية الكيميائية والـ ADME13 (راجع جدول المواد). سجل الوزن الجزيئي، ومساحة السطح القطبية الطوبولوجية (TPSA)، وقيمة consensus logP، ومانحي الروابط الهيدروجينية، ومستقبلي الروابط الهيدروجينية، والروابط القابلة للدوران، والامتصاص المعدي المعوي المتوقع، وتنبؤ P-glycoprotein، وتنبيهات Lipinski وVeber وGhose وEgan وMuegge وPAINS.
- احتفظ بالمستقلبات التي تم التعرف على بنيتها بنجاح، والتي يبلغ وزنها الجزيئي ≤500 Da، والتي لا تظهر عليها تنبيهات PAINS. سجل أي معيار لم يتم استيفاؤه والقرار المتخذ بشأن الاحتفاظ بالمستقلب أو استبعاده.
- حدد حالات التأين قبل التنبؤ بالأهداف والالتحام الجزيئي (docking). استخدم الكربوكسيلات منزوعة البروتون لـ butyrate وpropionate، وأشكال حمض الكربوكسيل المتعادلة للأحماض الصفراوية، والأمونيوم المبرتنت لـ tryptamine، والأشكال المتعادلة للمستقلبات المتبقية.
3. التنبؤ بالأهداف البشرية المرشحة
- افتح برنامج التنبؤ بأهداف التفاعل بين المركبات الكيميائية والبروتينات14 (انظر جدول المواد). أدخل اسم كل مستخلص أيضي أو رقم تعريف PubChem CID، واختر Homo sapiens (معرف التصنيف: 9606)، واضبط الحد الأدنى لدرجة التفاعل المجمعة على ≥0.700.
- أعطِ الأولوية لقنوات الأدلة التجريبية وقواعد البيانات المنسقة في برنامج التنبؤ بأهداف التفاعل بين المركبات الكيميائية والبروتينات. قم بتنزيل جدول الارتباط البروتيني الكامل لكل مستخلص أيضي.
- افتح برنامج الإرساء الجزيئي (molecular docking)15 (انظر جدول المواد). أرسل كل سلسلة SMILES مع اختيار Homo sapiens، واحتفظ بالأهداف التي تبلغ احتمالية تفاعلها ≥0.70.
- قم بدمج مخرجات التنبؤ بأهداف التفاعل بين المركبات الكيميائية والبروتينات ومخرجات برنامج الإرساء الجزيئي كمجموعة اتحاد لكل مستخلص أيضي. احتفظ بأي هدف يستوفي عتبة أي من قاعدتي البيانات، وقم بإزالة الإدخالات المكررة تماماً لرموز الجينات.
- قم بتوحيد إدخالات البروتين لتتوافق مع رموز الجينات المعتمدة من لجنة تسمية جينات البشر (HGNC) باستخدام خرائط معرفات البروتين لربطها برموز الجينات الموحدة المعتمدة من HGNC أو قاعدة بيانات معلومات الجينات البشرية المتكاملة (انظر جدول المواد). قم بتسوية الأسماء المستعارة، والرموز القديمة، وتوصيفات الأشكال المتعددة للبروتين (isoforms) لتنحصر في رمز جين واحد لكل بروتين.
- صنّف كل هدف على أنه مستقبل غشائي، أو مستقبل نووي، أو إنزيم، أو بروتين إشارات داخل خلوي، أو هرمون ببتيدي، أو بروتين مرتبط بالهرمونات، أو بروتين آخر داخل خلوي. وسجل هذه الفئة في جدول الأهداف.
4. مجموعة بيانات النسخ التحليلي وتحليل التعبير الجيني التفاضلي
- قم بالوصول إلى GSE36701 من خلال أداة تحليل التعبير الجيني التفاضلي القائمة على الويب في NCBI16,17 (راجع جدول المواد). دوّن أن مجموعة البيانات تتضمن بيانات التعبير عن خزعة المخاطية المستقيمة من مجموعات IBS-C، ومتلازمة القولون المتهيج السائدة بالإسهال (IBS-D)، وIBS ما بعد العدوى، ومجموعات من المتطوعين الأصحاء18.
- ابحث في GEO و ArrayExpress عن مجموعة تحقق مستقلة. استخدم تركيبات من IBS-C، ومتلازمة القولون المتهيج السائدة بالإمساك، والمخاطية المستقيمة، والمخاطية القولونية، والخزعة، والترانسكريبتوم، والمصفوفات الدقيقة (microarray)، و RNA-seq. دوّن المستودعات، ومصطلحات البحث، وتاريخ البحث، وما إذا تم تحديد مجموعة بيانات تحقق قابلة للمقارنة.
- قم بتشغيل أداة تحليل التعبير الجيني التفاضلي القائمة على الويب من سجل GSE36701 (راجع جدول المواد). قم بتعيين عينات IBS-C الـ 18 إلى مجموعة IBS-C، وتعيين المتطوعين الأصحاء الـ 40 إلى مجموعة التحكم، واترك عينات IBS-D و IBS ما بعد العدوى غير معينة.
- قم بإجراء تحليل التعبير التفاضلي باستخدام إطار حزمة تحليل التعبير الجيني التفاضلي مع تصحيح معدل الاكتشاف الخاطئ (FDR) بطريقة Benjamini-Hochberg19. قم بتنزيل جدول النتائج الكامل الذي يحتوي على معرف المسبار (probe ID)، ورمز الجين، وعنوان الجين، و logFC، و AveExpr، وإحصائية t المعدلة، وقيمة P الخام، وقيمة P المعدلة.
- قم بدمج المسابير إلى إدخالات على مستوى الجين. استبعد المسابير التي تفتقر إلى رموز الجينات؛ واحتفظ بالمسبار الذي يحتوي على أدنى FDR للرموز المكررة؛ واستخدم القيمة المطلقة الأكبر لـ logFC كمعيار لفك الارتباط.
5. تحليل التداخل بين الأهداف والجينات المتغيرة تعبيرياً والتقييم الإحصائي
- قم بإجراء تقاطع بين كل قائمة أهداف متوقعة خاصة بمستقلب معين وقائمة الجينات ذات التعبير التفاضلي (DEG) عند مستوى FDR < 0.05. سجل الجينات المتداخلة، والمستقلب المصدر، وقيمة logFC، وقيمة P المعدلة، واتجاه التعبير.
- دمج قوائم التداخل الخاصة بكل مستقلب في قائمة واحدة غير مكررة من الجينات المتأثرة بالمستقلبات (MAG). احسب إجمالي الأهداف المتوقعة، وعمليات التداخل الخاصة بكل مستقلب، وإجمالي جينات MAG الفريدة.
- قم بتقييم اتساق الاتجاه على مستوى المسبار (probe) للجينات التي تحتوي على مسبارات متعددة. ضع علامة تمييز على أي جين تختلف مسباراته في اتجاه التعبير.
- أنشئ جدول التوافق الخاص باختبار فيشر الدقيق (Fisher’s exact test) باستخدام إجمالي المدخلات المدمجة على مستوى الجين، وإجمالي جينات DEG، وإجمالي الأهداف المتوقعة الفريدة، وجينات MAG المرصودة. احسب قيمة P أحادية الذيل، ونسبة الأرجحية (odds ratio)، وفاصل الثقة 95% باستخدام تطبيق اختبار فيشر الدقيق.
- إذا تجاوز معدل DEG في الخلفية 50%، يتم تسجيل التداخل كوصفي بدلاً من كونه إثراءً تم التحقق منه بشكل مستقل. تعامل مع التنظيم الخافض الموحد كنمط اتجاهي وصفي ما لم يتم إجراء اختبار اتجاهية منفصل.
6. تحليل شبكة التفاعل بين البروتينات وإثراء المسارات
- قم بإرسال قائمة MAG الفريدة والكاملة إلى برنامج بناء شبكة التفاعلات بين البروتينات وإثراء المسارات20 (راجع جدول المواد). اختر Homo sapiens واضبط الحد الأدنى لدرجة التفاعل على 0.700.
- قم بتصدير الشبكة المدمجة الناتجة عن بناء شبكة التفاعلات بين البروتينات وإثراء المسارات وجدول التفاعلات الكامل. إذا أنتج التنقيب في النصوص (text-mining) طبوغرافيا كثيفة بشكل اصطناعي، قم بإلغاء تحديد التنقيب في النصوص والاحتفاظ بقنوات التجارب، والتعبير المشترك، وقواعد البيانات.
- قم بإنشاء شبكات فرعية لفئات المستقلبات الخاصة بـ MAGs المرتبطة بـ SCFA، والمرتبطة بالأحماض الصفراوية، والمرتبطة بالتريبتامين/السيروتونين. استخدم نفس إعدادات الكائن ومستويات الثقة الخاصة ببرنامج بناء شبكة التفاعلات بين البروتينات وإثراء المسارات.
- قم بتشغيل برنامج بناء شبكة التفاعلات بين البروتينات وإثراء المسارات مقابل موسوعة كيوتو للجينات والجينومات (KEGG)21، وReactome22، والعمليات البيولوجية في علم الوجود الجيني (GO Biological Process)23,24. طبق تصحيح Benjamini–Hochberg BH FDR <0.05 وقم بتصدير جميع جداول الإثراء.
7. الالتحام الجزيئي
- استرجع بنيات المستقبلات المحددة تجريبياً من بنك بيانات البروتينات التابع لمختبر التعاون البحثي للمعلوماتية الحيوية البنيوية RCSB PDB25 (راجع جدول المواد). استخدم VDR/1DB1، وNR1H4/FXR/3DCT، وCASP3/2DKO، وHTR2A/6A93 للمعقدات الخمسة ذات الأولوية من البروتين والربيطة.
- قم بتحضير كل مستقبل عن طريق الإبقاء على السلسلة A وإزالة الماء، والربيطات المشتركة في التبلور، والعوامل المساعدة، والأيونات، وسجلات HETATM غير البروتينية. بالنسبة لـ 6A93، قم بإزالة قطعة اندماج الليزوزيم T4 قبل تحضير المستقبل.
- أضف ذرات الهيدروجين القطبية، وخصص شحنات Gasteiger، واحفظ كل مستقبل بصيغة PDBQT باستخدام مجموعة أدوات البنية الجزيئية. افحص حالات برتنة الهيستيدين في موقع الارتباط قبل التحويل إلى PDBQT ووثق الحالات المختارة.
- قم بتوليد البنية ثلاثية الأبعاد لكل ربيطة في مجموعة أدوات تحويل ملفات البنية الكيميائية. قم بتقليل الطاقة باستخدام حقل القوة العام (UFF) لمدة 500 خطوة، وخصص حالة التأين عند pH 7.4، وخصص شحنات Gasteiger، واحفظ الملف بصيغة PDBQT.
- حدد صندوق إرساء بأبعاد 25 Å x 25 Å x 25 Å يتمركز حول المركز الهندسي للربيطة المشتركة في التبلور. استخدم المراكز (10, 19, 33) لـ VDR، و(137, 31, 78) لـ FXR، و(37, 34, 32) لـ CASP3، و(12, −1, 61) لـ HTR2A.
- قم بإجراء إرساء جزيئي لربيطات المستقلبات على البروتينات المستهدفة26,27 بقيم exhaustiveness = 8، وseed = 42، وnum_modes = 9، وenergy_range = 3 kcal/mol. سجل أعلى قيمة لدرجة Vina وقيم جذر متوسط مربع الانحراف (RMSD) لجميع الوضعيات.
- اختر النمط 1 (mode 1) لكل معقد ذو أولوية. قم بتوليد مخططات ثنائية الأبعاد للربيطة والبقايا باستخدام أداة تصور جزيئي وأداة مخططات تفاعل ثنائية الأبعاد، ومناظر ثلاثية الأبعاد للمستقبل والربيطة في برنامج تصور جزيئي ثلاثي الأبعاد.
- أجرِ ضوابط إعادة الإرساء (redocking) لـ VDR/1DB1 وFXR/3DCT. يتم قبول إعداد إرساء المستقبل عندما يكون RMSD للذرات الثقيلة <2.0 Å بالنسبة للوضعية البلورية.
- أجرِ ضوابط الإرساء المتقاطع (cross-docking) عن طريق إرساء حمض الليثوكوليك (LCA) في CASP3 والتريبتامين في VDR. قارن بين درجات الربيطات المتوافقة وغير المتوافقة وسجل الحالات التي يكون فيها فرق الدرجة <1.0 kcal/mol.
8. محاكاة الديناميكيات الجزيئية
- قم بتوليد بارامترات الربيطة باستخدام خدمة تحديد بارامترات الربيطة المتوافقة مع CHARMM28 (راجع جدول المواد). افحص جميع درجات الجزاء وقم بتمييز أي بارامتر بقيمة جزاء >50.
- حول ملفات تدفق الربيطة إلى ملفات .itp و .prm المتوافقة مع محرك الديناميكا الجزيئية باستخدام نص تحويل توبولوجيا حقل القوة. ادمج ملفات توبولوجيا الربيطة والبروتين لكل معقد.
- طبق إعادة تقسيم كتلة الهيدروجين باستخدام مكتبة تحويل التوبولوجيا الجزيئية والبارامترات. ولد توبولوجيات مائية باستخدام حقل القوة البروتيني المستخدم في محاكاة الديناميكا الجزيئية29 ونموذج مياه صريح ثلاثي المواقع30.
- قم بإذابة المعقدات المائية في صندوق اثني عشري السطوح مع خلوص لا يقل عن 1.2 nm بين المذاب والحافة. عادل الأنظمة وأضف NaCl بتركيز 0.15 M.
- قم ببناء نظام غشاء tryptamine-HTR2A باستخدام أداة بناء أنظمة الأغشية القائمة على الويب31,32,33 (راجع جدول المواد). استخدم إحداثيات المستقبل المحاذية لقاعدة بيانات توجيه البروتين الغشائي34 (راجع جدول المواد)، وطبقة ثنائية من POPC النقي، وطبقات مياه بسمك 22.5 Å، و NaCl بتركيز 0.15 M.
- قم بتقليل طاقة جميع الأنظمة بطريقة الانحدار الأكثر حدة لما يصل إلى 50,000 خطوة. تأكد من التقارب عند Fmax <1000 kJmol-1nm-1 قبل مرحلة التوازن.
- قم بموازنة الأنظمة المائية باستخدام مراحل مجموعة العدد الثابت من الجسيمات والحجم ودرجة الحرارة (NVT) ومجموعة العدد الثابت من الجسيمات والضغط ودرجة الحرارة (NPT). وازن نظام الغشاء باستخدام سير عمل تحضير وموازنة النظام الجزيئي متعدد المراحل المكون من ست خطوات والقائم على الويب مع تحرير القيود تدريجيًا.
- قم بتشغيل محاكاة ديناميكا جزيئية إنتاجية لمدة 200 ns لجميع المعقدات الخمسة. استخدم خطوة زمنية قدرها 4 fs مع إعادة تقسيم كتلة الهيدروجين HMR، ومنظم حرارة V-rescale عند 310 K، ومنظم ضغط Parrinello-Rahman عند 1 bar، وكهرومغناطيسية Particle mesh Ewald (PME)35، وقيود LINCS36.
- حلل المسارات النهائية باستخدام أدوات تحليل مسار الديناميكا الجزيئية. احسب RMSD للعمود الفقري، وتقلب جذر متوسط المربعات (RMSF) لـ Cα، ونصف قطر الدوران، ومساحة السطح المتاحة للمذيب (SASA)، والروابط الهيدروجينية بين البروتين والربيطة، باستخدام الـ 150 ns الأخيرة كنافذة تحليل أساسية.
9. تقدير الطاقة الحرة للارتباط بطريقة MM-PBSA
- استخرج لقطات المسار لتحليل MM-PBSA. استخدم 2,001 إطاراً لكل معقد مائي و201 إطاراً معالجاً للنظام الفرعي HTR2A المدمج في الغشاء.
- شغّل أداة حساب طاقة الارتباط بالميكانيكا الجزيئية/المذيب المستمر37 باستخدام تميه Poisson-Boltzmann، وثابت عزل داخلي = 1، وثابت عزل خارجي = 80، وتميه غير قطبي قائم على SASA، ودون تصحيح الإنتروبيا. سجّل متوسط الطاقة الحرة للارتباط والانحراف المعياري.
- أجرِ تفكيكاً لكل ثمالة لجميع المعقدات الخمسة. سجّل الثمالات المثبتة والمزعزعة التي تبلغ مساهماتها المطلقة ≥0.5 kcalmol−1.
النتائج
الأهداف المرشحة المرتبطة بالأيض
أنتجت المستقلبات التسعة مجموعات مستهدفة متوقعة غير متجانسة عبر برنامج للتنبؤ بأهداف التفاعل بين المواد الكيميائية والبروتينات وبرنامج للإرساء الجزيئي. وقد أسفر كل من البروبيونات، والتريبتامين، والأحماض الصفراوية، واليوروليثين A عن عدة أهداف ذات صلة معروفة بإشارات الجهاز الهضمي. وشمل مشهد الأهداف المتوقعة مستقبلات غشائية نمطية، ومستقبلات نووية، وإنزيمات داخل خلوية، وبروتينات إشارات، وبروتينات مرتبطة بالهرمونات الببتيدية. وبناءً على ذلك، توصف النتائج اللاحقة بأنها جينات مرتبطة بالمستقلبات (MAGs) بدلاً من كونها نتائج مقتصرة على المستقبلات فقط (الجدول 1).
المقارنة المرجعية مع تفاعلات المستقلبات والبروتينات المُبلغ عنها
لمقارنة مخرجات التنبؤ بالأهداف مع المعرفة التجريبية الحالية، صُنفت العلاقات المتنبأ بها بين المستقلبات والأهداف إلى ثلاثة مستويات من الأدلة: (1) تفاعلات مباشرة أو وثيقة على مستوى الفئة بين المستقلب والبروتين مدعومة تجريبياً، حيث تم الإبلاغ عن ارتباط المستقلب أو مستقلب داخلي وثيق الصلة بالبروتين المُشفر، أو تنشيطه، أو تثبيطه، أو تنظيمه وظيفياً؛ (2) تفاعلات مدعومة بالمسارات أو بفئة الأهداف، حيث ينتمي الهدف المتنبأ به إلى مسار مستجيب للمستقلبات أو عائلة مستقبلات معروفة، ولكن الأدلة المباشرة للزوج المحدد من المستقلب والبروتين محدودة؛ (3) ارتباطات حسابية فقط لم يتم تحديد تفاعل تجريبي مباشر لها في المراجع التي تمت مراجعتها. وقد استُخدمت عملية المقارنة هذه لوضع مجموعة الجينات المرتبطة بالمستقلبات (MAGs) المتنبأ بها في سياقها، وليس للتحقق من صحتها.
أعادت العديد من التنبؤات صياغة النتائج البيولوجية التي تم الإبلاغ عنها سابقاً. وقد اعتبر التنبؤ بـ Propionate-FFAR2 مدعوماً تجريبياً لأن FFAR2/GPR43 هو مستقبل نمطي للأحماض الدهنية قصيرة السلسلة. وصُنِّف التنبؤ بـ Butyrate-HDAC3 على أنه مدعوم تجريبياً أو مدعوم فئوياً لأن البوتيرات (butyrate) مثبط معروف لإنزيم نزع أسيتيل الهيستون، وتضمن التداخل المتوقع عضواً من عائلة HDAC. أما التنبؤات المرتبطة بالأحماض الصفراوية التي تشمل NR1H4/FXR وVDR فقد اعتبرت مدعومة ببيولوجيا المستقبلات النووية للأحماض الصفراوية الراسخة، لا سيما بالنسبة للأحماض الصفراوية الكارهة للماء مثل LCA؛ بينما فُسرت التنبؤات الخاصة بـ FXR المرتبطة بحمض Ursodeoxycholic acid (UDCA) بحذر لأن UDCA هو بشكل عام ربيطة (ligand) أضعف لـ FXR أو يعتمد تأثيره على السياق. وصُنِّفت التنبؤات الخاصة بـ HTR1B وHTR2A وHTR2B وHTR6 المرتبطة بالتريبتامين (tryptamine) على أنها مدعومة بمسار السيروتونين بدلاً من كونها تفاعلات مباشرة مؤكدة ومحددة للمستقبلات، لأن التريبتامين هو مونوأمين مشتق من التريبتوفان الميكروبي، ومستقبلات السيروتونين هي منظمات راسخة لحركية وإفرازات الجهاز الهضمي. واعتبر التنبؤ بـ Urolithin A-CASP3 مدعوماً بالمسار بناءً على الروابط المنشورة بين urolithin A والاستجابات المرتبطة بالموت الخلوي المبرمج/الكاسباز، وليس بناءً على دليل مباشر على ارتباط CASP3. أما Indole-3-lactic acid-KYAT1 وindole-3-propionic acid-KYAT1 فقد تم الإبقاء عليهما كفرضيات حاسوبية فقط لأن الأدبيات الأوسع تدعم إشارات المضيف بواسطة مشتقات الإندول الميكروبية، ولكن ليس الارتباط المباشر لـ KYAT1 بهذه المستقلبات تحديداً7,8,38,39,40.
وبناءً على ذلك، يوضح الجدول 1 التمييز بين ترشيح الأهداف حاسوبياً ومستوى الدعم التجريبي أو دعم المسارات المسبق. كما يوفر، لكل هدف، مصدر التنبؤ (تنبؤ بهدف تفاعل كيميائي-بروتيني، أو برنامج إرساء جزيئي، أو كليهما)، ودرجة التفاعل المجمعة لتنبؤ هدف التفاعل الكيميائي-البروتيني، واحتمالية برنامج الإرساء الجزيئي عندما يتم تحديد الهدف بواسطة برنامج إرساء جزيئي. وتوصف الأهداف المتنبأ بها والتي تفتقر إلى أدلة تجريبية مسبقة مباشرة بأنها جينات مرشحة مرتبطة بالنواتج الأيضية تتطلب تحققاً مستقلاً على مستوى البروتين واستجابة الرابطة.
التداخل بين الأهداف المتوقعة والجينات ذات التعبير التفاضلي في متلازمة القولون العصبي مع الإمساك (IBS-C)
أدى تقاطع قوائم الأهداف المتوقعة المجمعة والنتائج التفاضلية للتعبير الجيني إلى تحديد 17 جيناً فريداً متوقعاً مرتبطة بالمستقلبات، والتي أظهرت تعبيراً تفاضلياً ملحوظاً عند مقارنة مرضى IBS-C بالمتطوعين الأصحاء. وقد كانت جميع الجينات الـ 17 منخفضة التعبير. وشملت هذه المجموعة مستقبلات غشائية ونووية (CASR, FFAR2, GPR68, HTR1B, HTR2A, HTR2B, HTR6, NR1H4, TBXA2R, VDR) وبروتينات غير مستقبلية (CASP3, GCG, GNAQ, GPHN, HDAC3, KYAT1, MLN) (الجدول 1، الشكل 2A,B).
استوفت جميع مجموعات الجينات المجمعة (MAGs) الـ 17 عتبة معدل الاكتشاف الخاطئ (FDR) الأقل من 0.05؛ واستوفت 16 من أصل 17 المعيار الأكثر صرامة FDR < 0.001، بينما كان الجين المتبقي (HTR1B) معنوياً عند FDR < 0.05. واستوفت سبعة من الأهداف الـ 17 (CASP3, GCG, GNAQ, GPHN, GPR68, HDAC3, TBXA2R) كلاً من معيار FDR < 0.001 والقيمة المطلقة لتغير الطي اللوغاريتمي log2 التي تتجاوز 1.0 (يتراوح logFC من −1.34 إلى −1.10)، مما يشير إلى تثبيط قوي ومتسق لهذه المجموعة الفرعية. أما الأهداف المتبقية فقد أظهرت تثبيطاً متوسطاً ولكنه معنوي إحصائياً (تتراوح |logFC| من 0.45 إلى 0.97). وقد تم تفسير هذا النمط الوصفي الموحد بحذر، مع مراعاة خصائص التعبير الجيني على مستوى الجينوم لمجموعة البيانات (انظر التقييم الإحصائي أدناه).
التقييم الإحصائي للتداخل في الجينات المعبر عنها تفاضلياً (DEG) المستهدفة
لتقييم الدلالة الإحصائية لتداخل الـ 17 جينًا بشكل رسمي، تم تطبيق اختبار فيشر الدقيق (Fisher’s exact test) أحادي الطرف، باستخدام الجينات المستهدفة الـ 17 المتوقعة كمجموعة استعلام، وجميع المدخلات الفريدة المدمجة جينيًا والبالغ عددها 18,296 والتي تم اكتشافها في GSE36701 كخلفية جينومية. ومن هذه الخلفية، تبين أن 17,296 جينًا (94.5%) كانت ذات تعبير متباين عند FDR < 0.05، مما يعكس تثبيطًا نسخياً شبه شامل في مقارنة المخاطية المستقيمية لمرضى IBS-C. وكانت جميع الجينات المستهدفة الـ 17 المتوقعة من بين الجينات ذات التعبير المتباين (التداخل الملحوظ 17/17، 100%). وبالنظر إلى أن معدل التعبير المتباين في الخلفية بلغ 94.5%، فإن التداخل المتوقع لأي مجموعة يتم اختيارها عشوائيًا من 17 جينًا هو 16.1 جينًا. وقد أسفر اختبار فيشر الدقيق عن قيمة p = 0.384 مع نسبة أرجحية مصححة للاستمرارية بلغت 2.03 (فاصل ثقة 95% يتراوح بين 0.12–33.73)، وهي قيمة غير دالة إحصائيًا عند α = 0.05 (الشكل 3A–C).
تشير هذه النتيجة إلى أن التداخل الملحوظ بنسبة 17/17 لا يتجاوز التداخل المتوقع بمحض الصدفة في ظل ملف التعبير الجيني الشامل لهذه المجموعة من البيانات. وبناءً على ذلك، تُفسر هذه النتائج على أنها نمط اتجاهي وصفي، حيث تم تثبيط التعبير بشكل ثابت ومعنوي لجميع الأهداف الـ 17 المتوقعة في أنسجة المخاطية للمستقيم لدى المصابين بـ IBS-C، بدلاً من كونها دليلاً على إثراء إحصائي أو تحقق مستقل مقارنة بالخلفية الجينومية. يتطلب اختبار الإثراء الرسمي تكرار العملية في مجموعات بيانات ترانسكريبتومية ذات ملفات تعبير تفاضلي أكثر انتقائية، والتي يصل فيها عدد الجينات ذات الدلالة الإحصائية إلى أقل من نصف إجمالي الجينات بشكل ملحوظ. وتجدر الإشارة إلى أن التثبيط الموحد لجميع الجينات الـ 17 المتداخلة هو ملاحظة وصفية وليس نتيجة إحصائية تم التحقق منها بشكل منفصل، لأن خلفية التعبير التفاضلي في مجموعة البيانات هذه هي نفسها في الغالب مثبطة، وبالتالي فإن الاتجاه النزولي المشترك بين الجينات المتداخلة كان متوقعاً ولم يخضع لاختبار اتجاهية رسمي. لذا، لا ينبغي تفسير هذا الاتجاه الموحد على أنه دليل إحصائي مستقل على تنظيم منسق وخاص بالمستقلبات.
أنماط محددة للمستقلبات
سجل البروبيونات (Propionate) أكبر عدد من الجينات المتداخلة، بما في ذلك CASR وFFAR2 وGCG وGNAQ وGPHN وGPR68 وMLN وTBXA2R، مما يشير إلى احتمال مشاركة مسارات التأشير المستجيبة للأحماض الدهنية قصيرة السلسلة والمرتبطة ببروتين Gq. وتداخل البوتيرات (Butyrate) مع HDAC3، وهو ما يتوافق مع بيولوجيا نزع أسيتيل الهيستون المرتبطة بالبوتيرات، على الرغم من أن انخفاض تنظيم mRNA وحده لا يثبت تغير الاستجابة للبوتيرات. وشملت التداخلات المرتبطة بالأحماض الصفراوية المستقبلات النووية VDR وNR1H4، وكلاهما من المؤثرات المعروفة لتأشير الأحماض الصفراوية في الأمعاء38,39. وتداخل التريبتامين (Tryptamine) مع HTR1B وHTR2A وHTR2B وHTR6، مما يجعل تأشير السيروتونين وحدة مرشحة، وهو نظام له أدوار ثابتة في حركية الجهاز الهضمي وإفرازاته40. كما تداخل حمض إندول-3-لاكتيك وحمض إندول-3-بروبيونيك مع KYAT1، وتداخل اليوروليثين A مع CASP3.
إثراء المسارات
كشف تحليل الإثراء الوظيفي للجينات الـ 17 المتداخلة عن مسارات مرتبطة بتأشير المصب للمستقبلات المقترنة ببروتين G (GPCR)، وتأشير Gαq، وارتباط ربيطة GPCR، والمشبك السيروتونيني، والتفاعل بين الربيطة والمستقبل النشط عصبيًا، ونقل إشارة الكالسيوم، وتأشير cAMP، وإفراز الهرمونات الببتيدية. تتوافق هذه النتائج مع تكوين مجموعة الجينات وتدعم تماسكها البيولوجي، إلا أنها تعكس التعليق الوظيفي للجينات المقدمة بدلاً من أن تكون دليلاً مستقلاً على النشاط على مستوى المسار.
بنية شبكة التفاعل بين البروتينات
تم تفسير بناء شبكة التفاعلات البروتينية-البروتينية وتحليل إثراء المسارات عبر ثلاث شبكات متكاملة. في الشبكة الشاملة المكونة من 17 جيناً (الشبكة 1)، كان الهيكل الأكثر وضوحاً والمدعوم بالتوصيفات هو مكون إشارات GPCR/Gαq المتمحور حول GNAQ، والذي يربط GNAQ بالجينات المرتبطة بالمستقبلات، بما في ذلك TBXA2R و CASR و HTR2A و HTR2B. كما تم الاحتفاظ باتصال محدود لمستقبلات السيروتونين، وبشكل أبرز بين HTR2A و HTR2B، بينما ظلت عدة جينات أخرى معزولة أو ضعيفة الاتصال عند عتبة الثقة المختارة. وأظهرت الشبكة الخاصة بالبروبيونات (الشبكة 2) طوبولوجيا أكثر تقييداً، حيث احتفظ GNAQ بروابط مدعومة بالتوصيفات مع CASR و TBXA2R، في حين كانت FFAR2 و GPR68 و GCG و GPHN و MLN معزولة أو ضعيفة الاتصال. وشملت شبكة التريبتامين/السيروتونين (الشبكة 3) كلاً من HTR1B و HTR2A و HTR2B و HTR6؛ وضمن هذه المجموعة الفرعية، أظهر HTR2A و HTR2B الاتصال الرئيسي المدعوم بالتوصيفات، بينما لم يكن HTR1B و HTR6 متصلين بشكل مباشر عند العتبة المختارة (الشكل 4A–C).
الرسو الجزيئي
تم إجراء الإرساء الجزيئي على خمسة معقدات مختارة من البروتينات والمستقلبات. وأظهرت أزواج الأحماض الصفراوية والمستقبلات النووية درجات Vina أكثر ملاءمة من urolithin A-CASP3 وtryptamine-HTR2A. وسجل LCA-VDR أفضل درجة بلغت −10.0 kcal/mol، يليه LCA-NR1H4/FXR (−9.9 kcal/mol) ثم UDCA-NR1H4/FXR (−9.4 kcal/mol). أما Urolithin A-CASP3 وtryptamine-HTR2A فقد سجلا درجات أقل ولكنها تظل معقولة وبلغت −7.1 kcal/mol (الجدول 2).
بالنسبة لمعقد LCA-VDR (PDB ID: 1DB1)، كانت الوضعية المتوقعة مدعومة برابطة هيدروجينية تقليدية بين أكسجين كربوكسيلات LCA وSer278 (4.29 Å)، إلى جانب تلامسات كارهة للماء واسعة النطاق تشمل Leu230 وVal234 وTrp286 وVal300 وHis305 وTyr295 وLeu233 وHis397، وتلامسات فان دير فال إضافية مع Met272 وLeu313 وIle271 وIle268 وLeu309 وPhe422 وVal418 وAla231 وAla303 وCys288 وSer275 وPhe150. وقد سجلت الوضعية الأعلى ترتيباً درجة Vina بلغت −10.0 kcal/mol، وحجم تجويف قدره 2055 Å3، ومركز شبكة عند (10, 19, 33) (الجدول 3، الشكل 5A,B).
بالنسبة لمعقد LCA-NR1H4/FXR (برقم PDB ID: 3DCT)، كانت درجة الإرساء البالغة −9.9 kcal/mol مصحوبة بروابط هيدروجينية متوقعة تشمل His294 و Ile335، وتفاعل π-Sigma مع His294، وتماسات كارهة للماء من نوع Alkyl أو π-Alkyl تشمل Met290 و Met328 و Ala291 و Leu287 و Ile352 و His447، مع وجود تماسات van der Waals إضافية تدعم استقرار الهيكل الستيرويدي داخل جيب FXR (الجدول 4، الشكل 6A,B).
أظهر الوضع المتوقع لمعقد UDCA-NR1H4/FXR (PDB ID: 3DCT) وجود رابطة هيدروجينية تقليدية مع His447 (3.66 Å)، ورابطة هيدروجينية أخرى مع Gly322 (3.46 Å)، وتفاعل π-Anion مع Val325 (4.96 Å)، ورابطة كربون-هيدروجين مع Trp469 (4.51 Å). كما حددت خريطة التفاعل وجود تلامسات مانح-مانح غير مواتية مع Arg395 (3.89 Å) وGln396 (3.40 Å)، مما يشير إلى أن درجة Vina الأقل لـ UDCA مقارنة بـ LCA في جيب المستقبل نفسه قد تعود إلى هندسة موضعية أو خواص إلكتروستاتيكية أقل ملاءمة (الجدول 5، الشكل 7A,B).
في معقد urolithin A-CASP3 (برقم PDB ID: 2DKO)، تميز نمط الارتباط المتوقع بوجود روابط هيدروجينية تقليدية مع Gln161 (3.78 و 4.19 Å)، و Ser120 (3.95 Å)، و Arg207 (3.05 و 3.77 Å)، كما تعزز استقراره من خلال تفاعلات π-Cation مع Arg207، ورابطة هيدروجينية من نوع π-Donor مع Cys163، وتلامسات إضافية من نوع π-Alkyl وقوى van der Waals تشمل Arg64، و Ala162، و His121، و Ser205، و Trp206 (الجدول 6، الشكل 8A,B).
بالنسبة لمعقد tryptamine-HTR2A (PDB ID: 6A93)، تم تثبيت الوضعية المتوقعة بواسطة جسر ملحي إلكتروستاتيكي بين الأمين المبرتن لـ tryptamine و Asp155، وهو حمض الأسبارتيك المحفوظ في الحلزون عبر الغشائي 3 (D3.32 وفق ترقيم Ballesteros-Weinstein) الذي يثبت الأمين المبرتن لربيطات الأمين عبر مستقبلات السيروتونين والمستقبلات ذات الصلة41,42,43، إلى جانب روابط هيدروجينية مع Thr160 و Ser159، واتصالات أروماتية مع Phe340 و Trp336، وتفاعلات π-Alkyl مع Val156 و Ile163. كما دعمت اتصالات فان دير فال الإضافية مع Tyr370، و Phe339، و Ser242، و Phe243، و Phe332، و Leu123 نمط الارتباط بالجيب الأرثوستيري (الجدول 7، الشكل 9A,B).
التحقق من صحة بروتوكول الإرساء
لتقييم موثوقية بروتوكول الإرساء الجزيئي (docking)، تم إجراء تجربتين ضابطتين متكاملتين. بالنسبة لضوابط إعادة الإرساء (الإيجابية)، تم استخلاص الليجاندات المتبلورة مع البروتين من هياكل الأشعة السينية المرجعية الخاصة بها، وأعيد إرساؤها في مواقع ارتباطها الأصلية. وقد انحرفت الوضعية المتوقعة الأعلى تصنيفاً لنظير فيتامين D المسمى VDX في VDR/1DB1 بمقدار 0.87 Å عن الموضع البلوري، بينما انحرف الليجاند المتبلور مع البروتين WAY-362450 في FXR/3DCT بمقدار 1.79 Å؛ وكانت كلتا القيمتين أقل من عتبة القبول التقليدية البالغة 2.0 Å، مما يدعم الصلاحية الهندسية لبروتوكول الإرساء لأنظمة المستقبلات هذه (الشكل 10A،B). وبالنسبة لضوابط الإرساء المتبادل (السلبية)، تم إرساء حمض الليثوكوليك في caspase-3 (2DKO)، وهو بروتياز سيستئين لا يُعد حمض الليثوكوليك ليجاندًا معروفًا له، مما أعطى درجة متوقعة (−8.3 kcal/mol) أضعف بمقدار 1.7 kcal/mol مقارنة بهدفه المتوافق VDR (−10.0 kcal/mol)، وهو ما يتفق مع انتقائية موقع الارتباط المتوقعة. أما إرساء التريبتامين في VDR فقد أعطى درجة متوقعة بلغت −6.4 kcal/mol مقارنة بـ −7.1 kcal/mol في هدفه المتوافق HTR2A، وهو فرق قدره 0.7 kcal/mol يقع ضمن نطاق عدم اليقين المبلغ عنه في درجات الإرساء الجزيئي لليجاندات من المستقلبات مع البروتينات المستهدفة، وبالتالي يشير فقط إلى انتقائية متوقعة متواضعة لهذا الليجاند الأصغر حجماً (الشكل 10C). وبشكل عام، تشير هذه الضوابط إلى أن بروتوكول الإرساء يعيد إنتاج هندسيات الارتباط المعروفة ويميز بين الأزواج المتوافقة وغير المتوافقة في ظل الظروف المختبرة، مع بقاء هذه النتائج تنبؤات حاسوبية لا تغني عن قياسات الألفة التجريبية (الجدول 8).
محاكاة الديناميكيات الجزيئية
أُجريت عمليات محاكاة للديناميكا الجزيئية للمعقدات الخمس ذات الأولوية عبر مسارات إنتاج استمرت 200 ns. تمت محاكاة المعقدات الأربعة القابلة للذوبان والمستقبلات النووية في مذيب مائي صريح، بينما تمت محاكاة معقد tryptamine-HTR2A في طبقة ثنائية من ليبيدات POPC صريحة لتوفير بيئة غشائية ملائمة فسيولوجياً لهذا المستقبل المقترن ببروتين G. واختبرت التحليلات الاستقرار الديناميكي للأوضاع المرابطة تحت ظروف معتمدة على الوقت، وسمحت بمقارنة السلوك البنيوي النسبي عبر مختلف المعقدات (الجدول 9).
أظهر ملف RMSD لمعقد LCA-VDR/1DB1 فترة توازن قصيرة خلال أول 10 ns، تلاها استقرار في الهضبة، مع تقلبات تراوحت بشكل أساسي بين 0.20–0.28 nm (الشكل 11A). كانت قيم RMSF منخفضة، وكانت تقلبات العمود الفقري < 0.15 nm لمعظم البقايا (الشكل 11B). وأظهر تحليل الروابط الهيدروجينية وجود شبكة مستمرة من 2–5 روابط هيدروجينية، مع زيادات عرضية تصل إلى 7 (الشكل 11C). كما ظل نصف قطر الدوران (Rg) ضمن نطاق 1.25–1.75 nm، وظلت مساحة السطح المتاحة للمذيب (SASA) حول 130 nm2 (الشكل 11D,E).
أظهر معقد urolithin A-CASP3/2DKO نشاطاً ديناميكياً أكبر. فقد ارتفع RMSD في البداية ثم تذبذب بين 0.4 و0.7 nm، مع حدوث واقعة انحراف عالية وجيزة حوالي 165 ns (الشكل 12A). وأظهر تحليل RMSF حركية عالية على مستوى الثمالة، مع أكبر التقلبات في منطقة الحلقة المرنة حول الثمالة 175 (الشكل 12B). وكشف تحليل الروابط الهيدروجينية عن شبكة واسعة أولية تتكون من حوالي 2–5 روابط خلال أول 30–40 ns، تلتها روابط متقطعة تتراوح غالباً بين 0 و2 (الشكل 12C). وتظهر مخططات نصف قطر الدوران وSASA المقابلة في الشكل 12D،E.
بالنسبة لأنظمة أحماض الصفراء NR1H4/FXR (3DCT)، ظل مخطط RMSD للعمود الفقري ضمن نطاق ضيق نسبياً على مدار معظم مسار المحاكاة (الشكل 13A)، بينما أظهر مخطط RMSF حركية أقل في المناطق المركزية وتقلبات أعلى في المناطق المرنة (الشكل 13B). حافظ معقد LCA-3DCT على ما يقرب من ثلاث إلى أربع روابط هيدروجينية مستمرة طوال مسار المحاكاة، في حين أظهر معقد UDCA-3DCT تقلبات أكبر في الروابط الهيدروجينية وانخفاضاً في الترابط الهيدروجيني بعد حوالي 125 ns. وتظهر مخططات نصف قطر الدوران للأنظمة المرتبطة بـ LCA و UDCA في الشكل 13C,D على التوالي، وتظهر مخططات SASA المقابلة في الشكل 13E,F.
الديناميكيات الجزيئية للغشاء لمعقد tryptamine-HTR2A
تم إجراء محاكاة لمعقد tryptamine-HTR2A/6A93 لمدة 200 ns ضمن طبقة ليبيدية ثنائية صريحة من POPC تتكون من 258 جزيئاً ليبيدياً، ونموذج مياه صريح ثلاثي المواقع، و0.15 M NaCl، ليبلغ الحجم الإجمالي للنظام حوالي 100,925 ذرة33,44,45. ظل المستقبل مغروساً بشكل مستقر في الطبقة الثنائية طوال مسار المحاكاة (الشكل 14). ارتفع جذر متوسط مربع الانحراف (RMSD) للهيكل الأساسي من حوالي 0.10 nm إلى هضبة مستقرة تقرب من 0.15–0.20 nm خلال أول 100 ns وظل مستقراً بعد ذلك، حيث كانت جميع القيم أقل من 0.25 nm، مما يشير إلى أن المستقبل حافظ على تشكل مستقر في بيئة الغشاء دون حدوث تفكك عام (الشكل 15A). وأظهر جذر متوسط مربع التقلب (RMSF) لكل ثمالة تقلبات منخفضة في اللب الحلزوني عبر الغشائي مع زيادة متوقعة في الحركية في مناطق العروات والأطراف، وهو ما يتفق مع المرونة النموذجية لمستقبلات GPCR (الشكل 15B). وكان نصف قطر الدوران محصوراً بدقة بين حوالي 2.06 و2.12 nm، وتقلبت مساحة السطح المتاحة للمذيب (SASA) ضمن نطاق ضيق دون انزياح تدريجي، مما يؤكد كلاهما الحفاظ على الحزمة المدمجة عبر الغشائية (الشكل 15C,D).
تم الحفاظ على الروابط الهيدروجينية بين البروتين والرابطة طوال مسار المحاكاة (الشكل 15E)، مع وجود تقلبات رئيسية في عدد الروابط الهيدروجينية، تراوحت ما بين 1 إلى 3. ولتقييم استمرارية التفاعل الأيوني الرئيسي بشكل محدد، تم رصد الحد الأدنى للمسافة بين نيتروجين الأمونيوم المبرتن في التريبتامين وذرات أكسجين الكربوكسيلات في Asp155 (D3.32) طوال المسار الكامل. وظلت هذه المسافة موزعة بدقة حول متوسط قدره 0.270 nm (الحد الأدنى 0.247 nm، والحد الأقصى 0.424 nm)، كما تم الحفاظ على تلامس الجسر الملحي (< 0.4 nm) بنسبة 99.9% من وقت المحاكاة مع حدوث انحرافين عابرين قصيرين فقط، ودون وقوع أي حدث تفكك مستمر (الشكل 16). وتشير هذه النتائج إلى أن التفاعل الأيوني المحفوظ لـ Asp155 كان كافياً لتثبيت التريبتامين داخل الجيب الأرثوستيري لـ HTR2A طوال محاكاة الغشاء.
طاقة الارتباط الحرة وفق طريقة MM-PBSA والتحلل لكل ثمالة
أُجري تحليل MM-PBSA لإضافة طبقة إضافية من تحديد الأولويات الطاقية للمجمعات الخمسة (الجدول 10). وبالنسبة للمجمعات المائية الأربعة، حدد تحليل التفكيك لكل ثمالة (per-residue decomposition) المساهمات الطاقية الرئيسية لكل نمط ارتباط متوقع. في مجمع LCA-VDR/1DB1، أظهر الربيط وGln317 مساهمة مفضلة، بينما أظهر Trp286 مساهمة غير مفضلة. وفي مجمع urolithin A-CASP3/2DKO، أظهر كل من Arg64 وArg207 مساهمات سلبية قوية لكل ثمالة، مما يشير إلى استقرار قطبي أو إلكتروستاتيكي جوهري؛ ومع ذلك، ظل مسار المحاكاة المقابل ديناميكياً للغاية، مما يثبت أن الطاقويات المواتية على مستوى الثمالات وحدها لا تضمن استقرار المجمع بشكل مستدام. بالنسبة لأنظمة 3DCT، كان ارتباط LCA مدفوعاً بشكل أساسي بـ Arg331، بينما تضمن ارتباط UDCA شبكة طاقية أكثر توزيعاً تشمل Glu326 وAsp394 وArg395 وArg441 وAsp470. وعبر الأنظمة المائية الأربعة، دعم تفكيك MM-PBSA تحديد الأولويات النسبية للمجمعات القائمة على LCA.
بالنسبة لمعقد tryptamine-HTR2A/6A93 المدمج في الغشاء، أُجري تحليل MM-PBSA على النظام الفرعي للبروتين والرابط المستخلص من مسار الطبقة المزدوجة46,47. لُوحظت مساهمات مواتية للرابط والحمض الأميني Asp155 (D3.32)، والذي كان المساهم الأكثر هيمنة في التثبيت على مستوى البقايا، وهو ما يتوافق مع تفاعل الجسر الملحي الذي تم تحديده في كل من تحليلات الإرساء (docking) وتحليلات المسافة للمسار. وأظهر Trp137 أكبر مساهمة غير مواتية لكل بقية من بين بقايا جيب الارتباط الأصلي المحيطة (Ser86, Phe87, Phe133, Phe140, Phe141, Val156, Ser159, Thr160, Ile163, Val167, Tyr171)، والتي تشكل معاً شبكة التلامس العطرية والقطبية المبطنة لجيب الارتباط. تمثل هذه القيم تقديرات حاسوبية نسبية لتحديد الأولويات الهيكلية وليست قيم ألفة ارتباط تجريبية.
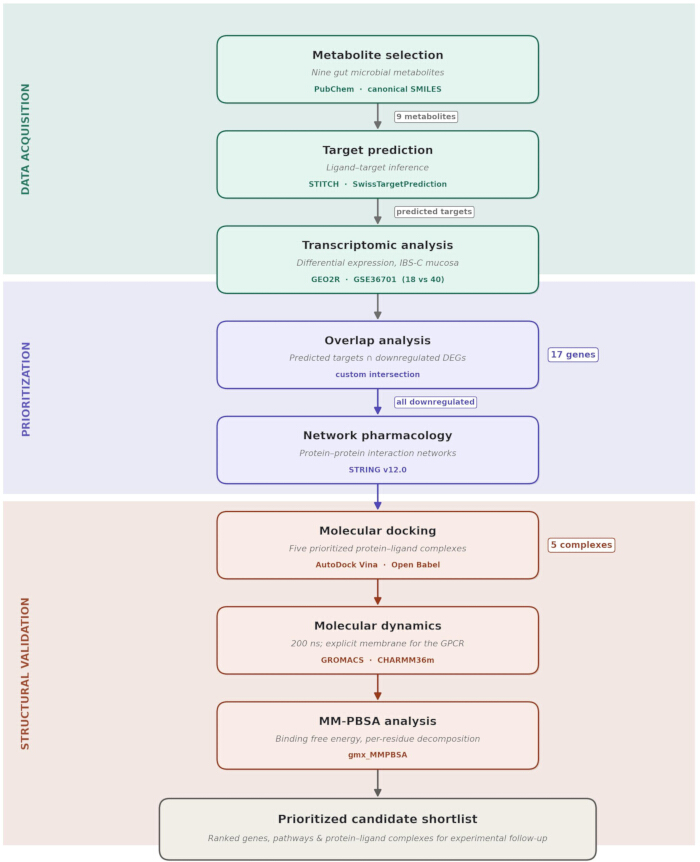
الشكل 1: سير العمل الحسابي لتحديد أولويات جينات المضيف المرتبطة بالمستقلبات في حالة IBS-C. تمثيل تخطيطي لسير العمل المكون من ثماني مراحل والذي يدمج اختيار المستقلبات، والتنبؤ بالأهداف، والتعبير التفاضلي للترانسكريبتوم، وتحليل التداخل، وإثراء الشبكات والمسارات، والرسو الجزيئي، ومحاكاة الديناميكيات الجزيئية، وتحليل الطاقة الحرة للارتباط بطريقة MM-PBSA. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
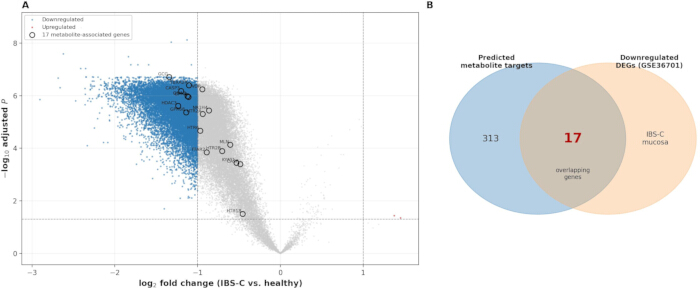
الشكل 2: تحليل التعبير التفاضلي وتداخل الأهداف مع المستقلبات في مخاطية IBS-C. (A) مخطط بركاني للتعبير التفاضلي على مستوى الجينات في GSE36701. تمثل النقاط الزرقاء الجينات التي انخفض تعبيرها بشكل ملحوظ؛ والنقاط الحمراء الجينات التي ارتفع تعبيرها بشكل ملحوظ؛ والنقاط الرمادية الجينات غير ذات الدلالة. تم وضع تسميات على جينات مختارة مرتبطة بالمستقلبات المتداخلة. (B) مخطط فين يوضح التداخل بين 330 هدفاً متوقعاً فريداً للمستقلبات والجينات ذات التعبير المنخفض في GSE36701؛ حيث تداخلت 17 جينة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
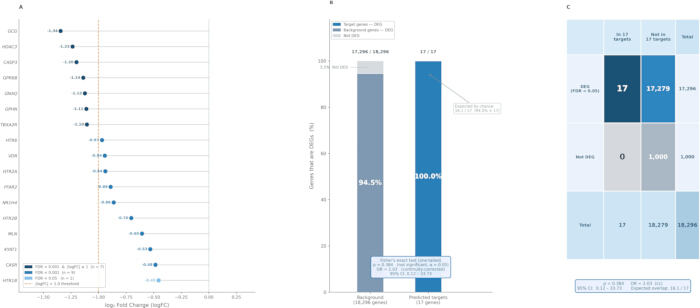
الشكل 3: التقييم الإحصائي لـ 17 جيناً مستهدفاً للمستقلبات تم التنبؤ بها مقابل GSE36701. (A) قيمة log2 fold change لكل جين من الجينات الـ 17، ملونة حسب مستوى الدلالة. (B) معدل التعبير التفاضلي لجينات الخلفية مقابل الأهداف المتنبأ بها، باستخدام اختبار فيشر الدقيق (Fisher’s exact test). (C) استخدام جدول تباين ثنائي (two-by-two contingency table) لاختبار فيشر الدقيق. أظهرت جميع الأهداف الـ 17 انخفاضاً معنوياً في التعبير؛ ويُفسر التداخل كنمط اتجاهي وصفي بدلاً من كونه إثراءً إحصائياً. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
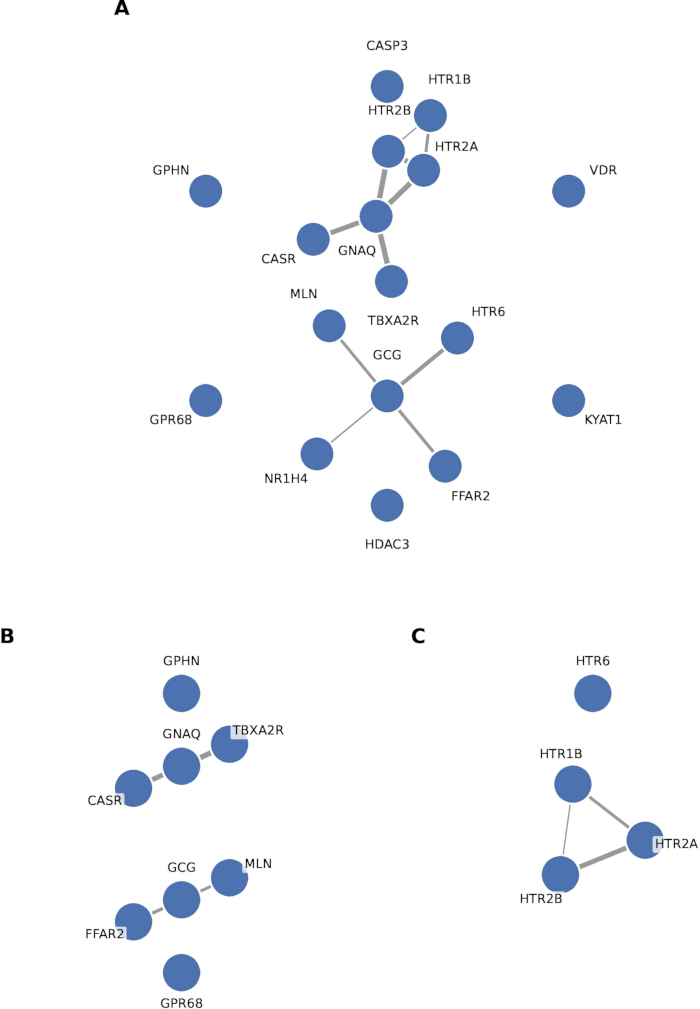
الشكل 4: بناء شبكة تفاعلات بروتين-بروتين مركبة وإثراء المسارات لشبكات تفاعل البروتينات-البروتينات للجينات المرتبطة بالأيض والمتقاطعة. (A) الشبكة 1: شبكة ميتا مدمجة لجميع الجينات الـ 17. (B) الشبكة 2: شبكة خاصة بالبروبيونات تضم ثمانية جينات (CASR, FFAR2, GCG, GNAQ, GPHN, GPR68, MLN, TBXA2R). (C) الشبكة 3: شبكة التربتامين/السيروتونين وتضم أربعة جينات (HTR1B, HTR2A, HTR2B, HTR6). تم إنشاء الشبكات للإنسان (Homo sapiens) كحد أدنى، باستخدام بناء شبكة تفاعلات البروتينات-البروتينات وإثراء المسارات بدرجة ثقة ≥ 0.700. تمثل الحواف الارتباط الوظيفي المدعوم بالتوصيف يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
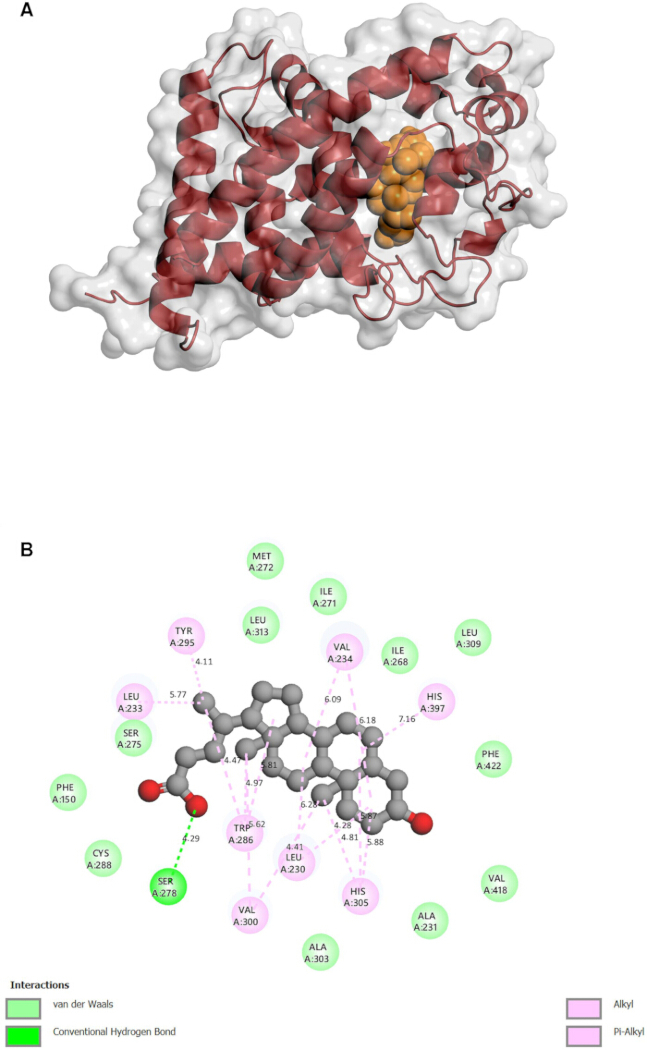
الشكل 5: تمثيل بنيوي ثلاثي الأبعاد وثنائي الأبعاد لحمض الليثوكوليك في معقد مع VDR (PDB ID: 1DB1). (A) تمثيل سطحي وكرتوني ثلاثي الأبعاد يظهر فيه حمض الليثوكوليك على شكل كرات. (B) خريطة تفاعلات ثنائية الأبعاد توضح الرابطة الهيدروجينية لـ Ser278 وجهات الاتصال الكارهة للماء وقوى فان دير فال المحيطة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
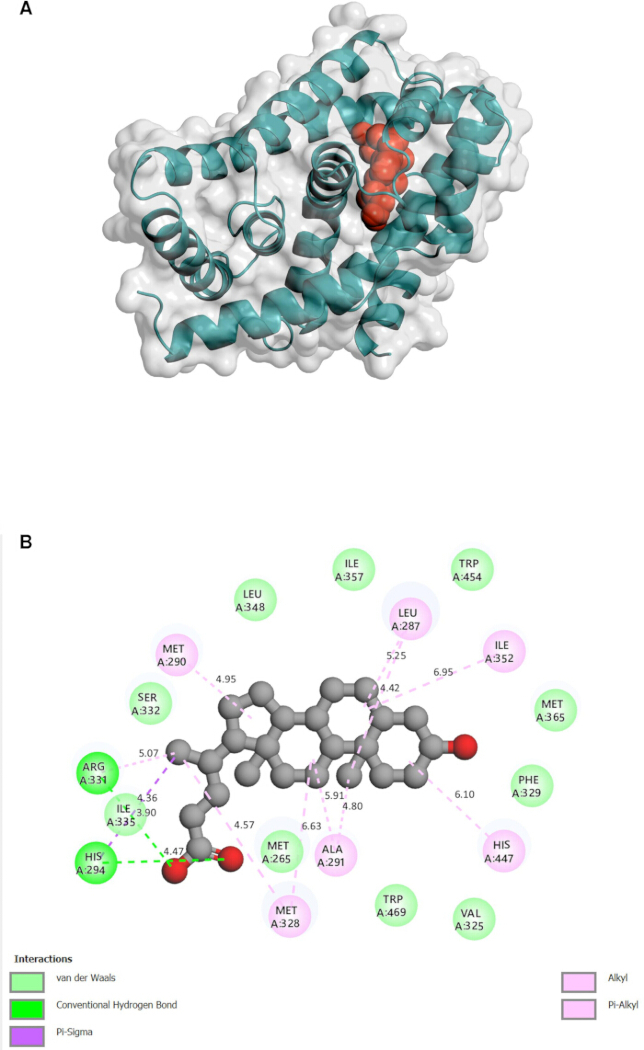
الشكل 6. تمثيل بنيوي ثلاثي الأبعاد وثنائي الأبعاد لحمض الليثوكوليك في معقد مع NR1H4/FXR (PDB ID: 3DCT). (A) تمثيل سطحي وكارتوني ثلاثي الأبعاد. (B) خريطة تفاعل ثنائية الأبعاد توضح الترابط الهيدروجيني مع His294 و Ile335، وتفاعل π-Sigma، وجهات الاتصال المحيطة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
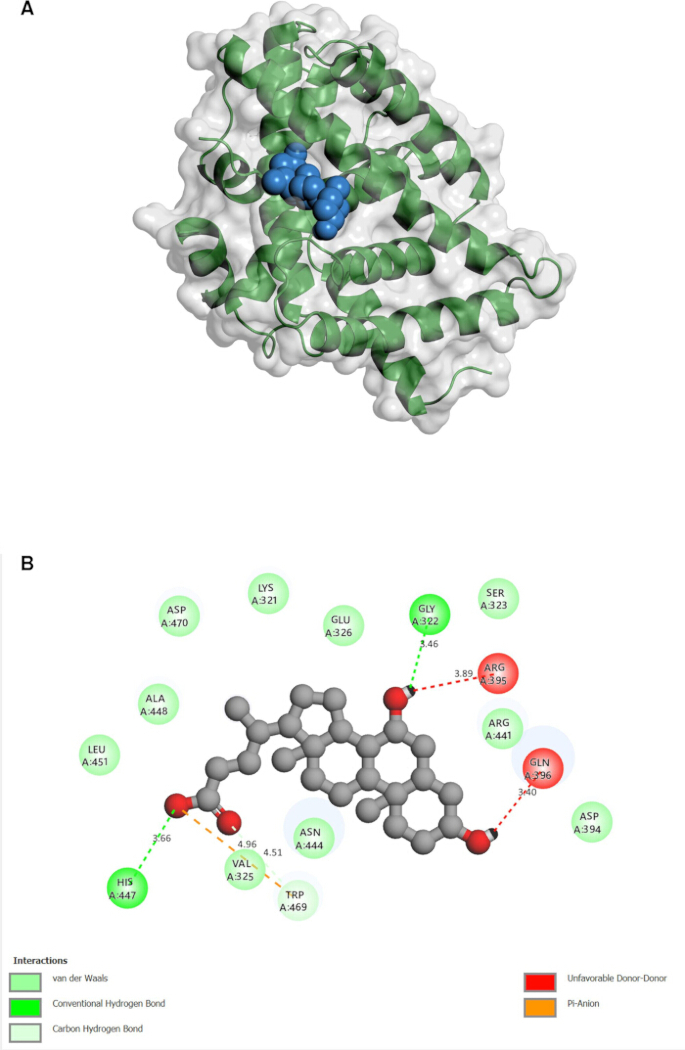
الشكل 7: تمثيل بنيوي ثلاثي الأبعاد وثنائي الأبعاد لحمض ursodeoxycholic في معقد مع NR1H4/FXR (PDB ID: 3DCT). (أ) تمثيل سطحي وكارتوني ثلاثي الأبعاد. (ب) خريطة تفاعلات ثنائية الأبعاد توضح وجود روابط هيدروجينية مع His447 و Gly322، وتفاعل π-Anion مع Val325، ورابطة كربون-هيدروجين مع Trp469، وتلامسات مانح-مانح غير مواتية مع Arg395 و Gln396. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
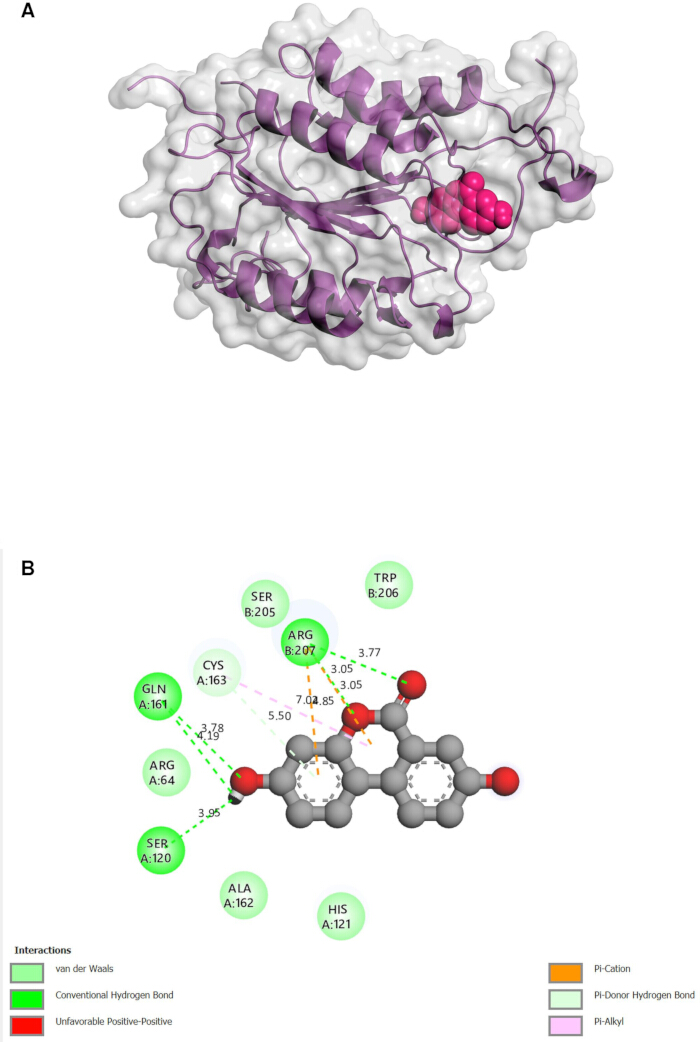
الشكل 8: تمثيل بنيوي ثلاثي الأبعاد وثنائي الأبعاد لمركب urolithin A مع CASP3 (PDB ID: 2DKO). (A) تمثيل سطحي وكارتوني ثلاثي الأبعاد. (B) خريطة تفاعلات ثنائية الأبعاد توضح الترابط الهيدروجيني مع Gln161 وSer120 وArg207، وتفاعلات π-Cation مع Arg207، ورابطة هيدروجينية من نوع π-Donor مع Cys163، والتماسات المحيطة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
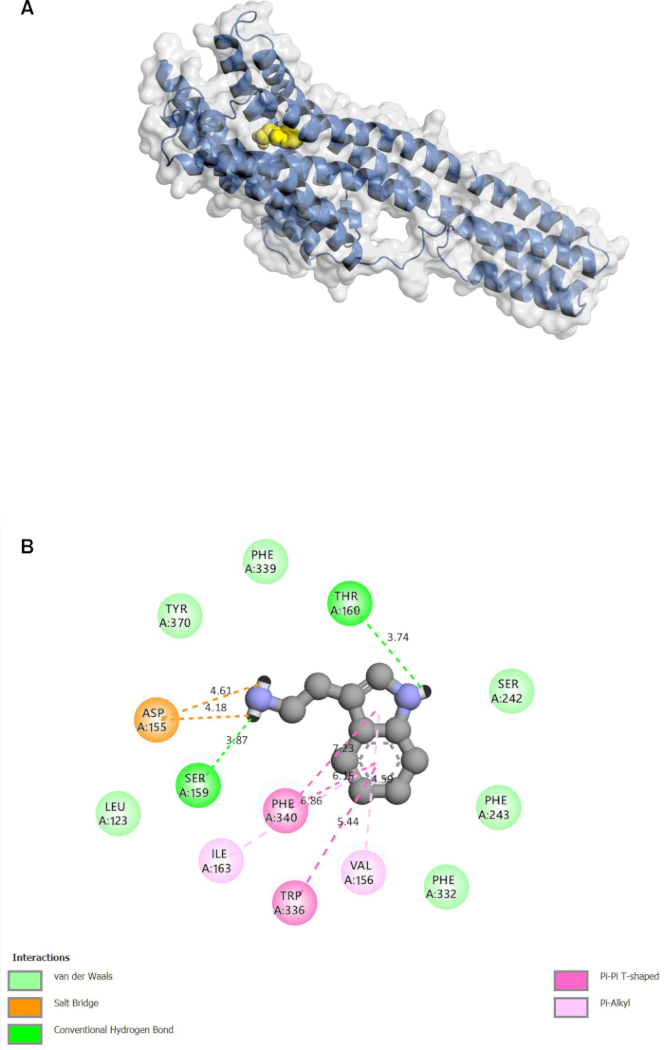
الشكل 9: تمثيل بنيوي ثلاثي الأبعاد وثنائي الأبعاد للتريبتامين في معقد مع HTR2A (معرف PDB: 6A93). (A) تمثيل سطحي وكرتوني ثلاثي الأبعاد تم إنشاؤه بواسطة برنامج تصور جزيئي ثلاثي الأبعاد. (B) خريطة تفاعل ثنائية الأبعاد تم إنشاؤها بواسطة أداة تصور جزيئي ومخطط تفاعل ثنائي الأبعاد، توضح الجسر الملحي لـ Asp155 وتفاعلات موقع الارتباط الإضافية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
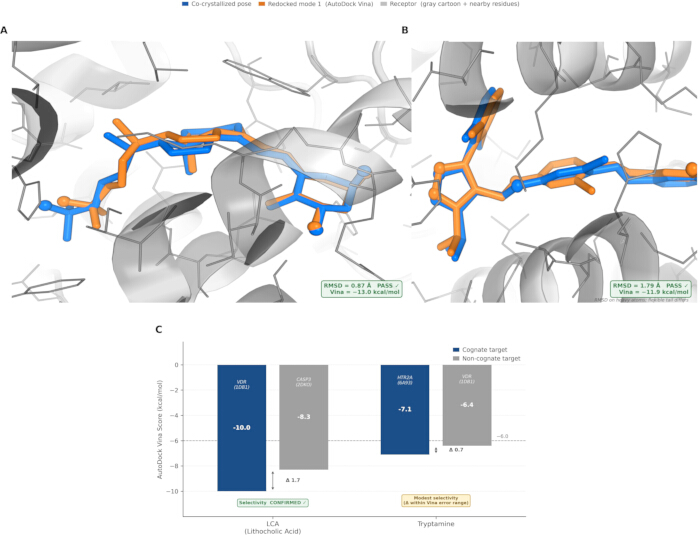
الشكل 10: التحقق من صحة بروتوكول الإرساء. (A,B) إعادة إرساء الروابط المشتركة في البلورة داخل VDR/1DB1 (قيمة RMSD تبلغ 0.87 Å) وFXR/3DCT (قيمة RMSD تبلغ 1.79 Å)؛ حيث تم تراكب الوضعيات البلورية وأوضاع إعادة الإرساء، وكلاهما يقع تحت عتبة القبول البالغة 2.0 Å. (C) انتقائية الإرساء المتقاطع: مقارنة قيم Vina للروابط المتوافقة مقابل غير المتوافقة لحمض الليثوكوليك والتريبتامين. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
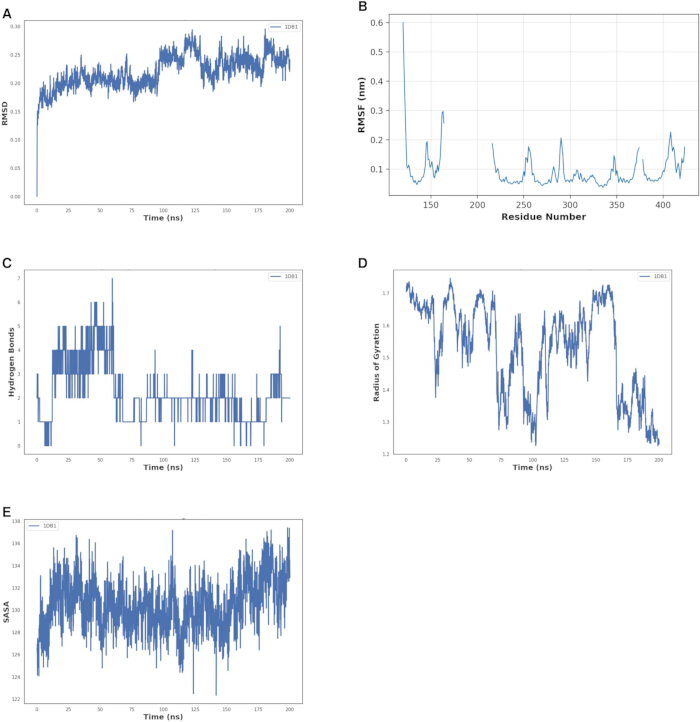
الشكل 11. تحليل مسار الديناميكيات الجزيئية لمعقد LCA-VDR/1DB1 على مدى 200 ns. (A) مخطط RMSD. (B) مخطط RMSF. (C) عدد الروابط الهيدروجينية. (D) مخطط نصف قطر الدوران. (E) مخطط SASA. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
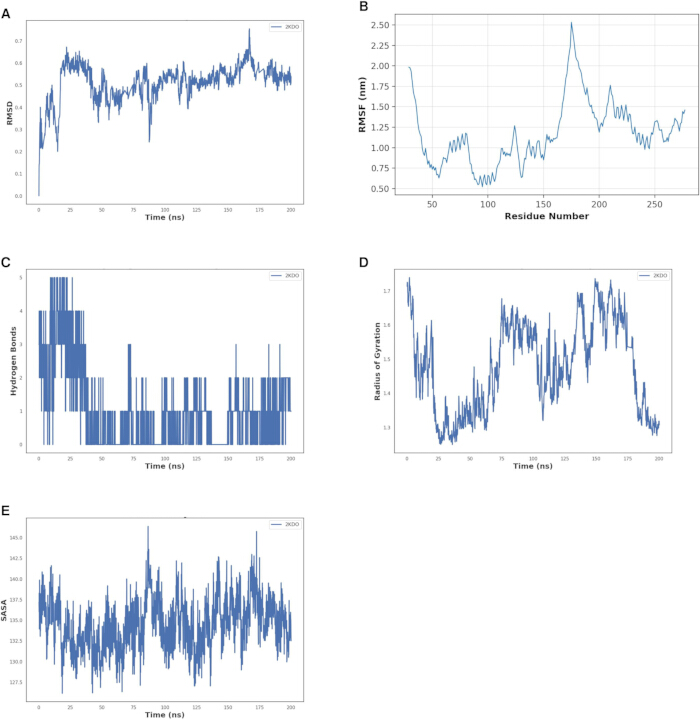
الشكل 12: تحليل مسار الديناميكيات الجزيئية لمعقد urolithin A-CASP3/2DKO على مدى 200 ns. (A) مخطط RMSD يوضح تقلبات تشكيلية واسعة وحدث انحراف عالٍ عابر بالقرب من 165 ns. (B) مخطط RMSF يوضح مرونة ملحوظة على مستوى البقايا بالقرب من البقية 175. (C) عدد الروابط الهيدروجينية. (D) مخطط نصف قطر الدوران (Radius-of-gyration). (E) مخطط SASA. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
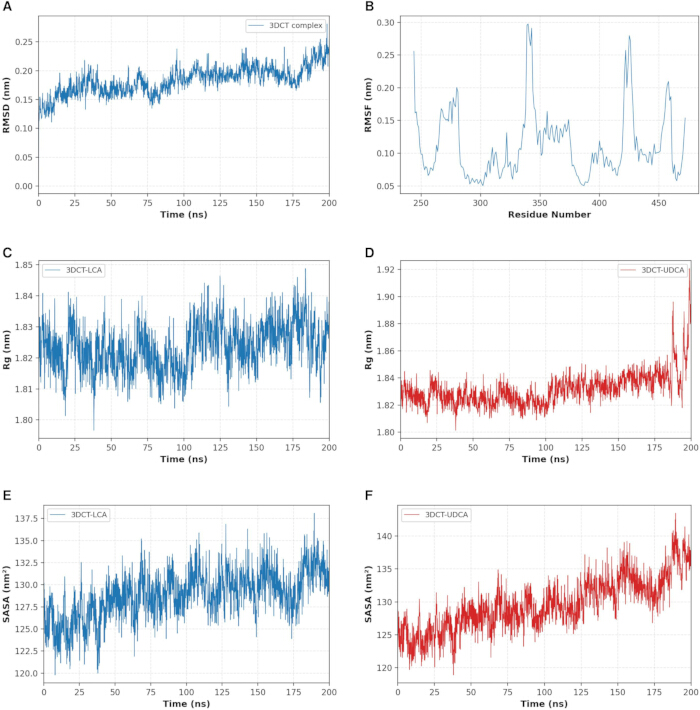
الشكل 13: تحليل مسار الديناميكيات الجزيئية لأنظمة الأحماض الصفراوية NR1H4/FXR (3DCT) على مدار 200 ns. (A) مخطط RMSD للعمود الفقري لمعقد 3DCT. (B) مخطط RMSF للعمود الفقري. (C) مخطط نصف قطر الدوران لـ 3DCT-LCA. (D) مخطط نصف قطر الدوران لـ 3DCT-UDCA. (E) مخطط SASA لـ 3DCT-LCA. (F) مخطط SASA لـ 3DCT-UDCA. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
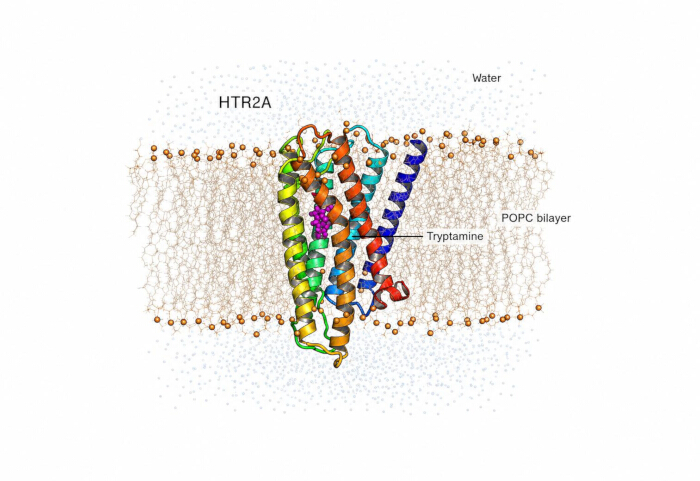
الشكل 14: معقد التريبتامين-HTR2A مدمجاً في طبقة ثنائية صريحة من دهون POPC. يظهر المستقبل كنموذج كرتوني يمتد عبر الطبقة الثنائية، وتظهر دهون POPC كخطوط مع إبراز مجموعات الفوسفات الرأسية، ويظهر التريبتامين داخل الجيب الأرثوستيري. كما يظهر الماء فوق وتحت الغشاء. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
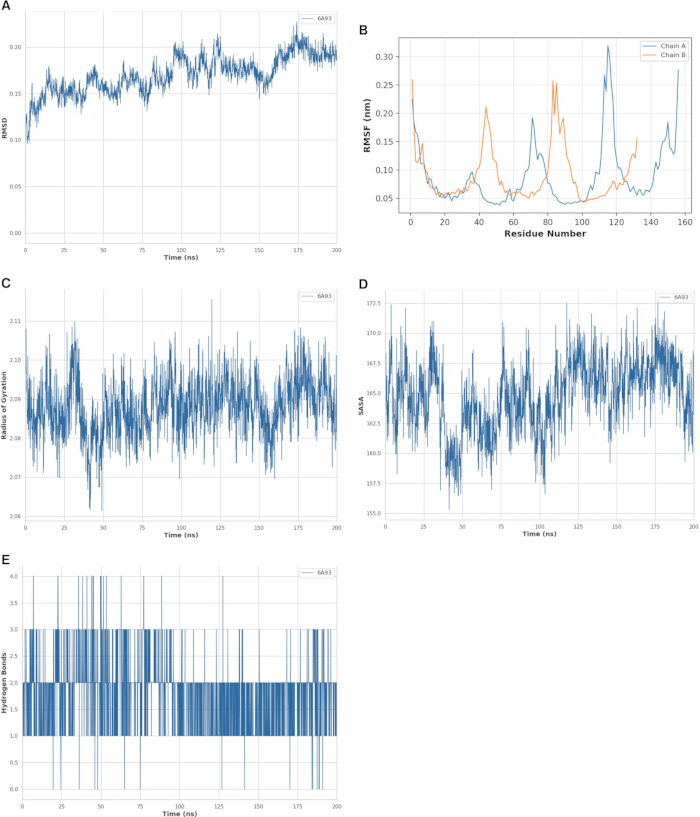
الشكل 15: تحليل مسار الديناميكا الجزيئية لمعقد tryptamine-HTR2A/6A93 على مدى 200 ns في طبقة ليبيد POPC ثنائية صريحة. (A) مخطط RMSD للعمود الفقري. (B) مخطط RMSF لكل بقية. (C) مخطط نصف قطر الدوران. (D) مخطط SASA. (E) عدد الروابط الهيدروجينية بين البروتين والرابط. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
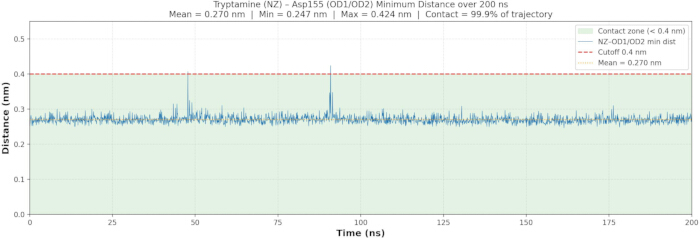
الشكل 16: استمرارية التفاعل الأيوني بين التريبتامين وAsp155 (D3.32) على مدار مسار الغشاء لمدة 200 ns. تم رسم الحد الأدنى للمسافة بين نيتروجين الأمونيوم في التريبتامين وذرات أكسجين الكربوكسيلات في Asp155 مقابل الوقت؛ ويمثل الخط المتقطع حد اتصال الجسر الملحي عند 0.4 nm. تم الحفاظ على الاتصال بنسبة 99.9% من وقت المحاكاة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| رمز الجين | المستقلب (المستقلبات) الأصلية | الفئة الوظيفية | log2FC | FDR (قيمة P المعدلة) | مستوى الدلالة |
| GCG | Propionate | بروتين مرتبط بالهرمونات الببتيدية | −1.342 | 1.97e−7 | FDR <0.001 & |logFC > 1 |
| HDAC3 | Butyrate | إنزيم | −1.234 | 2.44e−6 | FDR <0.001 & |logFC| > 1 |
| CASP3 | Urolithin A | إنزيم | −1.198 | 6.66e−7 | FDR <0.001 & |logFC| > 1 |
| GPR68 | Propionate | مستقبل غشائي | −1.137 | 4.35e−6 | FDR <0.001 & |logFC| > 1 |
| GNAQ | Propionate | بروتين إشارات داخل الخلايا | −1.122 | 1.05e−6 | FDR <0.001 & |logFC| > 1 |
| GPHN | Propionate | بروتين آخر داخل الخلايا | −1.109 | 1.13e−6 | FDR <0.001 & |logFC| > 1 |
| TBXA2R | Propionate | مستقبل غشائي | −1.104 | 4.04e−7 | FDR <0.001 & |logFC| > 1 |
| HTR6 | Tryptamine | مستقبل غشائي | −0.967 | 2.17e−5 | FDR <0.001 |
| VDR | Lithocholic acid | مستقبل نووي | −0.942 | 5.73e−7 | FDR <0.001 |
| HTR2A | Tryptamine | مستقبل غشائي | −0.937 | 4.99e−6 | FDR <0.001 |
| FFAR2 | Propionate | مستقبل غشائي | −0.889 | 1.44e−4 | FDR <0.001 |
| NR1H4 | Lithocholic acid / Ursodeoxycholic acid | مستقبل نووي | −0.861 | 3.68e−6 | FDR <0.001 |
| HTR2B | Tryptamine | مستقبل غشائي | −0.702 | 1.29e−4 | FDR <0.001 |
| MLN | Propionate | بروتين مرتبط بالهرمونات الببتيدية | −0.605 | 7.39e−5 | FDR <0.001 |
| KYAT1 | Indole-3-lactic acid / Indole-3-propionic acid | إنزيم | −0.530 | 3.61e−4 | FDR <0.001 |
| CASR | Propionate | مستقبل غشائي | −0.483 | 4.05e−4 | FDR <0.001 |
| HTR1B | Tryptamine | مستقبل غشائي | −0.455 | 3.18e−2 | FDR <0.05 |
الجدول 1: الجينات المستهدفة المتوقع ارتباطها بالمستقلبات والتي تتداخل مع الجينات ذات التعبير المتباين في مجموعة بيانات المخاطية المستقيمة لمرض IBS-C. كانت جميع الجينات المتداخلة المدرجة ذات تعبير منخفض. تم تقديم الجدول 1 بشكل منفصل كجدول بيانات، وهو يسرد لكل هدف: المستقلب (أو المستقلبات) الأصلية، والفئة الوظيفية، ومصدر تنبؤ الهدف (تنبؤ بالتفاعل الكيميائي-البروتيني، أو برنامج إرساء جزيئي، أو كلاهما)، ودرجة التفاعل المجمعة لتنبؤ التفاعل الكيميائي-البروتيني، واحتمالية برنامج الإرساء الجزيئي، وعند توفرها، مستوى التنبؤ، والـ log2 fold change، والـ FDR مع مستوى دلالة التعبير. المصدر: تم الحصول على قيم التعبير الجيني من جدول التعبير المتباين GSE36701 المجمع جينياً (المجس ذو الـ FDR الأدنى لكل جين). تم تجميع مصدر تنبؤ الهدف وقيم الثقة من مخرجات تنبؤ التفاعل الكيميائي-البروتيني ومخرجات برنامج إرساء جزيئي، باستخدام عتبات درجة تفاعل مجمعة لتنبؤ التفاعل الكيميائي-البروتيني ≥ 0.700 واحتمالية برنامج إرساء جزيئي ≥ 0.70. درجات تنبؤ التفاعل الكيميائي-البروتيني هي درجات مجمعة على مقياس من 0 إلى 1؛ ويرمز STP إلى احتمالية برنامج الإرساء الجزيئي. المستوى 1 = دعم صارم من تنبؤ التفاعل الكيميائي-البروتيني؛ المستوى +1 = دعم صارم من تنبؤ التفاعل الكيميائي-البروتيني مدعوم تقاطعياً بواسطة برنامج إرساء جزيئي.
| مركب | بروتين (معرف بنك بيانات البروتينات) | رابطة | درجة Vina (كيلو كالوري/مول) | حجم التجويف (A^3) | مركز الشبكة X,Y,Z (أ) | مربع البحث (أ) |
| LCA-VDR | VDR (1DB1) | حمض الليثوكوليك | −10.0 | 2055 | 10, 19, 33 | 25 × 25 × 25 |
| LCA-NR1H4/FXR | NR1H4/FXR (3DCT) | حمض الليثوكوليك | −9.9 | 3395 | 137, 31, 78 | 25 × 25 × 25 |
| UDCA-NR1H4/FXR | NR1H4/FXR (3DCT) | حمض أورسوديوكسيكوليك | −9.4 | 3395 | 137, 31, 78 | ٢٥ × ٢٥ × ٢٥ |
| يوروليثين أ-CASP3 | CASP3 (2DKO) | يوروليثين أ | −7.1 | 233 | 37, 34, 32 | ٢٥ × ٢٥ × ٢٥ |
| تريبتامين-HTR2A | HTR2A (6A93) | تريبتامين | −7.1 | 3238 | 12, −1, 61 | 25 × 25 × 25 |
الجدول 2: نتائج الإرساء الجزيئي: أعلى درجات الإرساء الجزيئي لربيطات المستقلبات على البروتينات المستهدفة ومعايير التجويف لخمسة معقدات بروتين-ربيطة ذات أولوية. يتم تقديم حجم التجويف بوحدة Å3. المصدر: Docking_Validation/Results/Docking_Validation_Results.xlsx، ورقة 'Original_Docking_Scores'. الإرساء الجزيئي لربيطات المستقلبات على البروتينات المستهدفة؛ الشمولية = 8، البذرة = 42 (ثابتة)، عدد الأنماط = 9 لجميع المعقدات؛ تم تقديم الوضع الأعلى تصنيفاً (النمط 1).
| نوع التفاعل | الثمالة (الثمالات) | المسافة (A) | ملاحظات |
| رابطة هيدروجينية تقليدية | Ser278 | 4.29 | أكسجين الكربوكسيلات في LCA |
| تلامس كاره للماء / Pi-Alkyl | Leu230, Val234, Trp286, Val300, His305, Tyr295, Leu233, His397 | - | |
| تلامس فان دير فالس | Met272, Leu313, Ile271, Ile268, Leu309, Phe422, Val418, Ala231, Ala303, Cys288, Ser275, Phe150 | - |
الجدول 3: أنماط الارتباط الناتجة عن إرساء حمض الليثوكوليك مع VDR (PDB ID: 1DB1). المصدر: أداة التصور الجزيئي ومخطط التفاعل ثنائي الأبعاد، مخططات التفاعل ثنائية الأبعاد بين الرابط وبقايا الأحماض الأمينية، كما ورد في قسم النتائج (الإرساء الجزيئي) في المخطوطة. تشير العلامة '-' إلى أن قيمة المسافة لم يتم تسجيلها بشكل فردي لهذا التلامس.
| نوع التفاعل | الثمالة (الثمالات) | المسافة (A) | ملاحظات |
| رابطة هيدروجينية | His294 | - | |
| رابطة هيدروجينية | Ile335 | - | |
| تفاعل Pi-Sigma | His294 | - | |
| تفاعل ألكيلي / Pi-ألكيلي (كاره للماء) | Met290, Met328, Ala291, Leu287, Ile352, His447 | - | |
| تلامس فان دير فالز | ثمالات إضافية في الجيب (غير محددة بشكل فردي في المصدر) | - | يدعم استيعاب الهيكل الستيرويدي |
الجدول 4: أنماط الارتباط الناتجة عن عملية الإرساء لحمض الليثوكوليك مع مستقبل NR1H4/FXR (معرف PDB: 3DCT).
المصدر: أداة التصور الجزيئي ومخططات التفاعل ثنائية الأبعاد؛ مخططات التفاعل ثنائية الأبعاد بين الرابط والمخلفات، كما ورد في قسم النتائج (الرسو الجزيئي) في المخطوطة. تشير العلامة '-' إلى أن قيمة المسافة لم يتم تسجيلها بشكل فردي لهذا التلامس.
| نوع التفاعل | الثمالة (الثمالات) | المسافة (A) | ملاحظات |
| رابطة هيدروجينية تقليدية | His447 | 3.66 | |
| رابطة هيدروجينية | Gly322 | 3.46 | |
| تفاعل Pi-Anion | Val325 | 4.96 | |
| رابطة كربون-هيدروجين | Trp469 | 4.51 | |
| تلامس مانح-مانح غير ملائم | Arg395 | 3.89 | |
| تلامس مانح-مانح غير ملائم | Gln396 | 3.40 |
الجدول 5: أنماط الارتباط الناتجة عن إرساء حمض أورسوديوكسي كوليك مع NR1H4/FXR (PDB ID: 3DCT). المصدر: أداة التصور الجزيئي ومخططات التفاعل ثنائية الأبعاد لتفاعلات الربيطة مع البقايا، كما ورد في نتائج المخطوطة (الإرساء الجزيئي). تشير العلامة '-' إلى أن قيمة المسافة لم يتم تسجيلها بشكل فردي لهذا التلامس.
| نوع التفاعل | الثمالة (الثمالات) | المسافة (A) | ملاحظات |
| رابطة هيدروجينية تقليدية | Gln161 | 3.78 | |
| رابطة هيدروجينية تقليدية | Gln161 | 4.19 | تلامس ثانٍ |
| رابطة هيدروجينية تقليدية | Ser120 | 3.95 | |
| رابطة هيدروجينية تقليدية | Arg207 | 3.05 | |
| رابطة هيدروجينية تقليدية | Arg207 | 3.77 | تلامس ثانٍ |
| تفاعل Pi-Cation | Arg207 | - | |
| رابطة هيدروجينية Pi-Donor | Cys163 | - | |
| تلامس Pi-Alkyl / van der Waals | Arg64, Ala162, His121, Ser205, Trp206 | - |
الجدول 6: أنماط الارتباط الناتجة عن إرساء urolithin A مع CASP3 (PDB ID: 2DKO). المصدر: أداة التصور الجزيئي ومخطط التفاعل ثنائي الأبعاد، مخططات التفاعل ثنائية الأبعاد بين الليجاند والبقايا، كما ورد في نتائج المخطوطة (الإرساء الجزيئي). تشير العلامة '-' إلى أن قيمة المسافة لم يتم الإبلاغ عنها بشكل فردي لهذا التلامس.
| نوع التفاعل | الثمالة (الثمالات) | المسافة (أ) | ملاحظات |
| جسر ملحي إلكتروستاتيكي | Asp155 (D3.32) | - | الأمين البروتوني للتريبتامين |
| الرابطة الهيدروجينية | Thr160 | - | |
| رابطة هيدروجينية | Ser159 | - | |
| تلامس عطري | Phe340, Trp336 | - | |
| تفاعل باي-ألكيل | Val156, Ile163 | - | |
| تلامس فان دير فالس | Tyr370, Phe339, Ser242, Phe243, Phe332, Leu123 | - |
الجدول 7: أنماط الارتباط الناتجة عن عملية إرساء tryptamine مع HTR2A (PDB ID: 6A93). المصدر: أداة التصور الجزيئي وأداة مخطط التفاعل ثنائي الأبعاد لمخططات التفاعل ثنائية الأبعاد بين الرابط والمتبقي، كما ورد في نتائج المخطوطة (الإرساء الجزيئي). تشير العلامة '-' إلى أن قيمة المسافة لم يتم تسجيلها بشكل فردي لهذا الاتصال.
| (أ) التحقق من إعادة الإرساء (الضوابط الإيجابية) | ||||||
| معرف PDB | بروتين | ربيطة البلورة المشتركة | درجة فينا (كيلو كالوري/مول) | جذر متوسط مربع الانحراف (أنجستروم) | العتبة (أ) | النتيجة |
| 1DB1 | مستقبلات فيتامين د (VDR) | VDX (نظير فيتامين د) | −13.0 | 0.87 | 2.0 | ناجح |
| التصوير المقطعي المحوسب ثلاثي الأبعاد (3DCT) | مستقبل الفاروكسيد (FXR) | WAY-362450 (064) | −11.9 | 1.79 | 2.0 | اجتياز |
| (ب) التحقق من صحة العبور الرصيفي (الضوابط السلبية) | ||||||
| رابطة جزيئية | الهدف المتماثل (PDB) | درجة التشاكل (كيلوكالوري/مول) | الهدف غير المتطابق (PDB) | درجة عدم التطابق (كيلوكالوري/مول) | دلتا (كيلوكالوري/مول) | الانتقائية |
| حمض الليثوكوليك | VDR (1DB1) | −10.0 | CASP3 (2DKO) | −8.3 | 1.7 | تم التأكيد |
| تريبتامين | HTR2A (6A93) | −7.1 | VDR (1DB1) | −6.4 | 0.7 | متواضع (ضمن نطاق عدم اليقين لبرنامج Vina بمقدار ±0.5-1.0) |
الجدول 8: نتائج التحقق من صحة بروتوكول الإرساء: قيم RMSD لإعادة الإرساء (الضوابط الموجبة) ودرجات الإرساء المتقاطع (الضوابط السالبة).المصدر: Docking_Validation/Results/Docking_Validation_Results.xlsx و Docking_Validation/Logs/*.log (إرساء جزيئي لربيطات المستقلبات مع البروتينات المستهدفة، الشمولية = 8، البذرة = 42، صندوق بأبعاد 25 Å × 25 Å × 25 Å). تم حساب RMSD عن طريق مطابقة أسماء الذرات للذرات الثقيلة (بدون تراكب).
| المعقد | RMSD (nm)، المتوسط + / – SD (المدى) | Rg (nm)، المتوسط + / – SD (المدى) | SASA (nm^2)، المتوسط + / – SD (المدى) | الروابط الهيدروجينية، المتوسط + / – SD (المدى) | RMSF (nm)، المتوسط (الحد الأقصى) |
| LCA-VDR/1DB1 | 0.230 + / – 0.025 (0.167–0.296) | 1.889 + / − 0.009 (1.863–1.919) | 130.4 + / − 2.3 (122.3–137.4) | 1.9 + / − 0.9 (0–7) | 0.093 (الحد الأقصى 0.600 عند الثمالة 120) |
| LCA-NR1H4/FXR/3DCT | 0.190 + / – 0.020 (0.135–0.281) | 1.824 + / − 0.008 (1.804–1.849) | 129.7 + / − 2.3 (121.9–138.1) | 3.8 + / − 0.7 (1–6) | 0.113 (الحد الأقصى 0.298) |
| UDCA-NR1H4/FXR/3DCT | 0.190 + / – 0.020 (0.135–0.281) | 1.834 + / − 0.013 (1.809–1.921) | 131.0 + / − 3.4 (121.6–143.5) | 1.1 + / − 1.1 (0–5) | 0.113 (الحد الأقصى 0.298) |
| Urolithin A-CASP3/2DKO | 0.521 + / – 0.058 (0.244–0.755) | 1.892 + / − 0.024 (1.839–1.984) | 134.9 + / − 3.0 (126.4–146.4) | 0.6 + / − 0.7 (0–3) | 1.172 (الحد الأقصى 2.532 عند الثمالة 175) |
| Tryptamine-HTR2A/6A93 (غشاء) | 0.177 + / – 0.017 (0.131–0.227) | 2.089 + / − 0.007 (2.070–2.116) | 165.1 + / − 2.7 (156.–172.7) | 1.7 + / − 0.7 (0–4) | 0.090 (الحد الأقصى 0.319) |
الجدول 9: ملخص لسلوك محاكاة الديناميكا الجزيئية لمدة 200 ns لخمسة معقدات بروتين-لجين ذات أولوية، بما في ذلك نظام tryptamine-HTR2A المدمج في الغشاء. المصدر: ملفات أدوات تحليل مسار الديناميكا الجزيئية (.xvg) — gmx rms، وgmx gyrate، وgmx sasa، وgmx hbond، وgmx rmsf — والتي حُسبت على مدار الـ 150 ns الأخيرة (50–200 ns) من كل عملية إنتاج مدتها 200 ns، وفقاً للخطوة 8.8 من البروتوكول. تم ملاءمة RMSD/Rg مع الهيكل الأساسي؛ نصف قطر مسبار SASA هو 0.14 nm؛ حد قطع المانح-المستقبل للرابطة الهيدروجينية (H-bond) هو 0.35 nm / 30 °. يتشارك LCA-3DCT و UDCA-3DCT في مسار هيكل بروتيني واحد (RMSD، RMSF) مع قيم Rg/SASA/H-bonds خاصة بكل لجين.
| Tryptamine-HTR2A/6A93 (غشاء) — تفكيك كمي لكل ثمالة | ||
| الثمالة | إجمالي مساهمة ddG (kcal/mol)، المتوسط ± الانحراف المعياري SD | الاتجاه |
| Asp155 (D3.32) | −89.94 + / − 6.81 | مثبت (سائد) |
| Tryptamine (ربيطة) | −13.01 + / − 6.22 | مثبت |
| Tyr171 | 13.62 + / − 4.54 | مزعزع للاستقرار |
| Val167 | 23.32 + / − 3.96 | مزعزع للاستقرار |
| Val156 | 20.03 + / − 3.81 | مزعزع للاستقرار |
| Thr160 | 4.86 + / − 3.64 | مزعزع للاستقرار |
| Ser159 | 24.16 + / − 3.48 | مزعزع للاستقرار |
| Ser86 | 24.48 + / − 3.65 | مزعزع للاستقرار |
| Phe87 | 35.18 + / − 4.04 | مزعزع للاستقرار |
| Phe133 | 32.80 + / −3.70 | مزعزع للاستقرار |
| Phe140 | 30.63 + / − 3.84 | مزعزع للاستقرار |
| Phe141 | 35.25 + / − 3.55 | مزعزع للاستقرار |
| Ile163 | 27.64 + / − 3.71 | مزعزع للاستقرار |
| Trp137 | 53.77 + / − 4.32 | مزعزع للاستقرار (أكبر تأثير غير مواتٍ) |
| المجمعات الأربعة الأخرى — الثمالات المحددة في تفكيك لكل ثمالة (نوعي) | ||
| المجمع | الثمالة | الاتجاه |
| LCA-VDR/1DB1 | الربيطة (LCA) | مواتٍ |
| LCA-VDR/1DB1 | Gln317 | مواتٍ |
| LCA-VDR/1DB1 | Trp286 | غير مواتٍ |
| LCA-NR1H4/FXR/3DCT | Arg331 | مواتٍ (سائد) |
| UDCA-NR1H4/FXR/3DCT | Glu326 | شبكة مختلطة/موزعة |
| UDCA-NR1H4/FXR/3DCT | Asp394 | شبكة مختلطة/موزعة |
| UDCA-NR1H4/FXR/3DCT | Arg395 | شبكة مختلطة/موزعة |
| UDCA-NR1H4/FXR/3DCT | Arg441 | شبكة مختلطة/موزعة |
| UDCA-NR1H4/FXR/3DCT | Asp470 | شبكة مختلطة/موزعة |
| Urolithin A-CASP3/2DKO | Arg64 | مواتٍ بشدة (قطبي/كهروستاتيكي) |
| Urolithin A-CASP3/2DKO | Arg207 | مواتٍ بشدة (قطبي/كهروستاتيكي) |
الجدول 10: تحليل MM-PBSA لكل بقية حمض أميني ملخص قصير: البقايا المثبتة والمزعزعة للاستقرار (مساهمة مطلقة ≥ 0.5 kcal mol⁻1) لكل من المعقدات الخمسة ذات الأولوية من البروتين والربيطة، بما في ذلك نظام tryptamine-HTR2A المدمج في الغشاء.المصدر: Membrane Simulation/03_MMPBSA/results/FINAL_DECOMP_MMPBSA.dat (أداة حساب طاقة الارتباط للميكانيكا الجزيئية/المذيب المستمر Generalized Born (GB) لتحليل كل بقية حمض أميني، 'Complex: Total Energy Decomposition'). تم تحويل أرقام البقايا من الترقيم الداخلي للنظام المبني بواسطة CHARMM-GUI (إزاحة +68) إلى ترقيم PDB الأصلي لـ 6A93 المستخدم في مواضع أخرى من هذه المخطوطة.
المصدر: Previous_MD Simulation data/1DB1,2KD0, LCA & UDCA_3DCT}/mmpbsa_*/Decomposition_NORMAL_GB_Complex_TDC*.svg ونتائج المخطوطة (طاقة الارتباط الحرة MM-PBSA والتحلل لكل ثمالة). هذه المجمعات الأربعة لا تحتوي على مخرجات رقمية بتنسيق .dat/.csv لكل ثمالة في دليل المشروع (فقط رسوم SVG مُصيرة تحتوي على نصوص بمسارات متجهة غير قابلة للاستخراج آلياً)؛ وقد تم الإبلاغ فقط عن هوية الثمالة واتجاه التأثير المواتي/غير المواتي، كما ورد في نص المخطوطة. إن المساهمات الدقيقة بوحدة kcal/mol لهذه المجمعات الأربعة غير متوفرة في المستودع المصدر.
المناقشة
توضح هذه الدراسة الحسابية الاستكشافية سير عمل متكامل وقابل للتكرار لتحديد أولويات الجينات المضيفة المرتبطة بالمستقلبات الميكروبية ومعقدات البروتين-الربيطة، والتي طُبقت هنا على مجموعة بيانات ترانسكريبتومية عامة للغشاء المخاطي المستقيم لمرضى متلازمة القولون المتهيج المصحوب بإمساك (IBS-C). وباستخدام سير العمل هذا، تداخلت مجموعة فرعية من الجينات المتوقعة المرتبطة بالمستقلبات الميكروبية مع جينات تم خفض تعبيرها بشكل مستمر في مجموعة البيانات، حيث تجمعت ضمن مسارات GPCR، والمسارات السيروتونينية، وإشارات الكالسيوم، ومستقبلات الربيطات النشطة عصبيًا، والمسارات المرتبطة بالمستقبلات النووية، وهي أنظمة يزداد تورطها في التواصل بين الميكروبات والمضيف48,49. ويجب تفسير هذه النتائج بدقة على أنها مولدة للفرضيات فقط؛ حيث أن التحليل لا يقيس تركيزات المستقلبات الميكروبية، أو وفرة بروتين المستقبلات، أو ارتباط الربيطة، أو تنشيط المستقبلات، أو إشارات المصب، أو الحركية، أو الإفراز، أو استجابات الألم، أو النتائج السريرية. وأقوى استنتاج يمكن دعمه هو أن الجينات والمسارات المحددة هي مرشحة للتحقق التجريبي وليست آليات مرضية مؤكدة.
تكمن الأهمية البالغة لهذا البروتوكول، مقارنة بالأعمال السابقة التي درست أزواج المستقلب-المستقبل بشكل منفرد، في دمجه للتنبؤ بالأهداف، والترانسكريبتوميات العامة، وتحليل الشبكات، والارتباط الجزيئي مع ضوابط التحقق، والديناميكيات الجزيئية، وMM-PBSA ضمن مسار تسلسلي واحد لتحديد الأولويات. حيث تعمل كل مرحلة على تضييق وسياق مجموعة المرشحين الناتجة عن المرحلة السابقة، وهذا الترشيح التسلسلي هو ما يجعل قائمة المرشحين النهائية قابلة للتنفيذ تجريبياً. وتعتبر وحدة GPCR المتمحورة حول GNAQ والوحدة المرتبطة بمستقبل السيروتونين المحددة هنا منطقية بيولوجياً بالنظر إلى دور إشارات Gq في تنشيط phospholipase C، وإنتاج inositol 1,4,5-trisphosphate، وتعبئة الكالسيوم، والإفراز، والوظيفة المعوية الصماوية، والأدوار الراسخة لإشارات الأحماض الدهنية قصيرة السلسلة والتربتوفان في التوازن المخاطي، وإشارات السيروتونين في الحركية المعدية المعوية، والإفراز، والحساسية الحشوية، والتواصل بين الأمعاء والدماغ10,18,50,51.
تتمثل إحدى السمات المنهجية الرئيسية لهذه الدراسة في التعامل مع المستقبل HTR2A المدمج في الغشاء. ونظراً لأن محاكاة الطور الذائب لا يمكنها إعادة إنتاج البيئة الدهنية التي تحكم السلوك التشكيلي للمستقبل المقترن ببروتين G، فقد تمت محاكاة معقد tryptamine-HTR2A في طبقة ثنائية صريحة من POPC. وفي هذه البيئة الغشائية، ظل المستقبل مستقراً هيكلياً على مدار مسار المحاكاة الكامل الذي استمر لمدة 200 ns، كما تم الحفاظ على الجسر الملحي بين أمونيوم tryptamine و Asp155 (D3.32) طوال فترة المحاكاة تقريباً. إن التقاء ثلاثة أدلة مستقلة -وضعية الارتباط (docking pose)، ومسافة التلامس المستمرة عبر مسار المحاكاة، ومساهمة MM-PBSA السائدة لكل ثمالة- حول التفاعل المحفوظ نفسه لـ D3.32 يمنح اتساقاً داخلياً لنمط ارتباط tryptamine المتوقع، والذي يعيد إنتاج هندسة الارتباط النموذجية للربيطات الأمينية في مستقبلات السيروتونين.
هناك بعض المسائل المنهجية التي يجب مراعاتها عند إعادة إنتاج سير العمل هذا. إن الأخطاء في البنية القانونية أو المركبات التي تسبب تداخلاً في الاختبارات العامة ((PAINS)- flagged compounds) تنتقل عبر التنبؤ بالأهداف والرسو الجزيئي، مما يتطلب اختياراً دقيقاً للمستقلبات وتنسيقاً كيميومعلوماتياً. يجب تقليل مجموعات الأهداف المدفوعة بالضجيج من خلال تطبيق معايير الثقة باستمرار (التنبؤ بأهداف التفاعل بين الكيميائيات والبروتينات: ≥0.700؛ برنامج الرسو الجزيئي: ≥0.70؛ بناء شبكة التفاعلات بين البروتينات وإثراء المسارات: ≥0.700). وينبغي تجميع الأهداف المتوقعة حسب الفئة الوظيفية لتجنب التوصيف الخاطئ لجميع الجينات المرتبطة بالمستقلبات على أنها مستقبلات. ويُعد المعالجة المسبقة الدقيقة لبنى PDB، وتقليل طاقة الرابطة، ووضع الشبكة حول بقايا الربط المعروفة جوانب أساسية في عملية الرسو، كما توفر ضوابط إعادة الرسو والرسو المتقاطع المقدمة هنا مقياساً موضوعياً لصحة منهجية الرسو. ويتم تحديد نطاق إمكانية التكرار في الديناميكيات الجزيئية من خلال مزيج من تحديد معاملات حقل القوة، والترطيب المناسب أو بناء الغشاء، والتوازن المتدرج، وأخذ عينات الإنتاج الكافية.
تشمل التعديلات المعتادة وخطوات استكشاف الأخطاء وإصلاحها تخفيف العتبات إذا لم تسفر التنبؤات المستهدفة عن أي نتائج، والتحقق من الاتساق الاتجاهي على مستوى المسبار للجينات التي تحتوي على مسبارات متعددة، وتفسير عقد بناء شبكة التفاعل بين البروتينات وإثراء المسارات المعزولة على أنها تعتمد على العتبة بدلاً من اعتبارها غير ذات صلة بيولوجياً. بالنسبة لمستقبلات الغشاء، يجب استخدام محاكاة صريحة لطبقة الليبيد الثنائية بدلاً من المحاكاة المائية، كما هو موضح في طريقة HTR2A الموصوفة هنا. وعندما يكون تحليل تفكيك الطاقة لكل بقايا ضرورياً، يجب إجراء الحساب باستخدام محرك قادر على التفكيك، كما يجب مطابقة ترقيم البقايا المُبلغ عنه مع ترقيم المستقبل الأصلي لتجنب الغموض. ونقترح التعامل مع نتائج إثراء المسارات كسياق تنظيمي لقائمة المرشحين بدلاً من اعتبارها تحققاً على مستوى المسار. ومن الناحية الميكانيكية، سيحدث إثراء لمصطلحات GPCR، أو السيروتونينية، أو إشارات الكالسيوم كلما احتوت قائمة الجينات على جينات متعددة لمستقبلات السيروتونين، بغض النظر عن التنظيم المشترك على مستوى البروتين. كما يجب تفسير قيم RMSD و Rg و RMSF لنظام HTR2A المدمج في الغشاء مع مراعاة طبقة الليبيد الثنائية؛ حيث قد يعكس انخفاض Rg في المسار اللاحق تكيفاً تشكيلياً لحزمة عبر الغشائية مدفوعاً بالطبقة الثنائية بدلاً من الانكشاف العالمي، ويجب تفسير الروابط الهيدروجينية المستمرة بين الليجاند والبروتين جنباً إلى جنب مع استقرار RMSD العام.
إن القيود التي شابت هذه الدراسة كبيرة وتحد من عملية التفسير. فقد استند البحث إلى مجموعة بيانات عامة واحدة صغيرة نسبيًا، ولم يسفر البحث في المستودعات العامة الرئيسية للترانسكريبتوم (أداة تحليل التعبير الجيني التفاضلي القائمة على الويب وArrayExpress) عن تحديد مجموعة بيانات مستقلة لترانسكريبتوم المخاطية المستقيمة لمرضى IBS-C ذات تصميم ومنصة مماثلة يمكن أن تكون بمثابة مجموعة تكرارية وقت التحليل. ويُعد غياب التكرار الترانسكريبتومي المستقل قيداً رئيسياً، ولا ينبغي تفسير أي عبارة في هذه المخطوطة على أنها تحقق خارجي لنتائج مجموعة البيانات الواحدة. تُظهر مجموعة البيانات تعبيراً تفاضلياً شبه شامل (حوالي 94.5% من الجينات ذات دلالة، والغالبية العظمى منها مثبطة)، وهي خاصية تجعل إحصائيات الإثراء التقليدية غير مفيدة وتمنع استخلاص استنتاجات حول خصوصية تثبيط الجينات المستهدفة مقارنة بالخلفية الجينومية؛ وبناءً على ذلك، تم الإبلاغ عن التداخل كنمط اتجاهي وصفي بدلاً من إثراء إحصائي. كما أن تحليلات الترانسكريبتوم للمخاطية الكلية (Bulk mucosal transcriptomics) لا يمكنها التمييز بين التنظيم الجيني الفعلي والتغيرات في التكوين الخلوي. ولا يحدد تعبير mRNA وفرة البروتين أو الاستجابة الوظيفية. وتعاني قواعد بيانات التنبؤ بالأهداف من تحيز التوصيف، كما تعتمد نتائج docking وMD وMM-PBSA على اختيار حقل القوة، ومعايير الربيطة (ligand parameterization)، والموضع الابتدائي، ووقت المحاكاة، وكفاية أخذ العينات. إن المعرفات الدقيقة للإصدارات/البناء لبعض مكونات خادم الويب والحزم، بما في ذلك خدمة معايير الربيطة المتوافقة مع CHARMM، وCHARMM-GUI، وبيئة الحوسبة الإحصائية
لم يكن من الممكن استعادة إصدارات بناء الحزم، والإصدارات الفرعية لأداة حساب طاقة الارتباط بالميكانيكا الجزيئية/المذيب المستمر بشكل كامل من سجل المشروع المؤرشف، ويجب الإبلاغ عنها على أنها متوفرة في جدول المواد المنفصل. وتعتبر قيم MM-PBSA تقديرات نسبية، ولا تحتوي على حد صريح لإنتروبيا التشكيل، ولا ينبغي تفسيرها على أنها ألفات تجريبية. تفتقر الدراسة إلى البيانات الميتابولومية، ولا يمكنها تحديد ما إذا كانت وفرة الربيطة تتغير في حالات IBS-C، أو ما إذا كانت تغيرات التعبير الملاحظة هي مسببات، أو نتائج، أو استجابات تعويضية، أو ارتباطات غير ذات صلة.
يجب أن تشمل التطبيقات المستقبلية لهذه الطريقة تكرار النسخ الترانسكريبتومي بشكل مستقل، وتفاعل البوليميراز المتسلسل الكمي (qPCR)، والتحقق من مستوى البروتين، وتحديد موقع النوع الخلوي عن طريق الترانسكريبتوميات أحادية الخلية أو الترانسكريبتوميات المكانية، والتنميط الميتابولومي لفئات المستقلبات ذات الصلة، ومقايسات استجابة الربيطة الوظيفية في الكولونيدات المشتقة من المرضى، أو المستأصلات المخاطية، أو النماذج المماثلة. ومن شأن إجراء مقارنات مع مجموعات مرضى متلازمة القولون المتهيج ذات الغلبة الإسهالية، ومتلازمة القولون المتهيج المختلطة، ومرض الأمعاء الالتهابي، ومجموعات الإمساك غير المرتبط بمتلازمة القولون المتهيج1,2 أن تساعد في تحديد خصوصية المرض. أما بالنسبة للمكون الهيكلي، فإن تكرار مسارات الديناميكا الجزيئية (MD)، وإجراء تحليلات الحساسية باستخدام وضعيات بداية بديلة، والتوثيق الكامل لإيداع الطوبولوجيا، والمسارات، وملفات مدخلات ومخرجات MM-PBSA، من شأنه أن يعزز قابلية إعادة الإنتاج بشكل أكبر. وتظل مقايسات استجابة الربيطة التجريبية ضرورية لتحديد ما إذا كانت المعقدات ذات الأولوية ذات صلة وظيفية؛ حيث لا تدعم النتائج الحالية أي ادعاءات سريرية أو علاجية.
الإفصاحات
يقر المؤلف بعدم وجود تضارب في المصالح.
شكر وتقدير
لم يتم تلقي أي تمويل خارجي لهذه الدراسة. ويتم التعبير عن الامتنان للإتاحة العامة لمجموعة بيانات GSE36701 ومصادر STITCH وSwissTargetPrediction وSwissADME وSTRING وRCSB Protein Data Bank وGene Expression Omnibus وCHARMM-GUI وOrientations of Proteins in Membranes (OPM)، بالإضافة إلى برمجيات AutoDock Vina وGROMACS وCHARMM36m وCGenFF وgmx_MMPBSA وOpen Babel وPyMOL وDiscovery Studio Visualizer.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| AutoDock Vina | مؤسسة سكريبس للأبحاث / مفتوح المصدر | v1.2.7؛ https://vina.scripps.edu/ | الالتحام الجزيئي لربيطات المستقلبات بالبروتينات المستهدفة. |
| CGenFF/ParamChem | SilcsBio / جامعة ميريلاند | v4.6؛ https://cgenff.com/ | توصيف معاملات حقل القوة للّجين في المحاكاة الديناميكية الجزيئية. |
| حقل القوة CHARMM36m | مطورو CHARMM / مفتوح المصدر | CHARMM36m؛ https://www.charmm.org/charmm/resources/charmm-force-fields/ | حقل القوة البروتيني المستخدم في محاكاة الديناميكيات الجزيئية. |
| أداة بناء الغشاء CHARMM-GUI | CHARMM-GUI / جامعة ليهاي | خادم ويب؛ الإصدار الدقيق غير قابل للاسترداد؛ https://www.charmm-gui.org/?doc=input/membrane | إعداد بناء وموازنة نظام غشاء POPC الصريح. |
| برنامج Discovery Studio Visualizer | BIOVIA (Dassault Systèmes)èأشهر) | 2021؛ https://discover.3ds.com/discovery-studio-visualizer-download | تحليل ثنائي الأبعاد للتفاعل بين الربيطة والثمالة. |
| GEO2R | قاعدة بيانات التعبير الجيني NCBI Gene Expression Omnibus | أداة ويب؛ تم الدخول إليها في الفترة من يناير إلى مايو 2026؛ https://www.ncbi.nlm.nih.gov/geo/geo2r/ | تحليل التعبير التفاضلي لـ GSE36701. |
| GeneCards | معهد ويزمان للعلوم | قاعدة بيانات إلكترونية؛ تم الدخول إليها في الفترة من يناير إلى مايو 2026؛ https://www.genecards.org/ | التحقق من رمز الجين ومعلومات الجين أثناء توحيد الهدف. |
| gmx_MMPBSA | مفتوح المصدر (Valdé(s-Tresanco وآخرون) | 1.5.x؛ https://valdes-tresanco-ms.github.io/gmx_MMPBSA/ | تقدير الطاقة الحرة للارتباط بطريقة MM-PBSA والتحلل لكل ثمالة. |
| GROMACS | فريق تطوير GROMACS / مفتوح المصدر | 2024.2؛ https://www.gromacs.org/ | محرك محاكاة الديناميكيات الجزيئية. |
| مجموعة بيانات النسخ GSE36701 | مستودع بيانات التعبير الجيني التابع للمركز الوطني لمعلومات التكنولوجيا الحيوية (NCBI Gene Expression Omnibus) | GSE36701؛ https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE36701 | مجموعة بيانات التعبير الجيني العامة لغشاء المستقيم في حالات متلازمة القولون المتهيج المصحوبة بإمساك (IBS-C). |
| أوبن بابيل (Open Babel) | مفتوح المصدر | 3.2.0؛ https://openbabel.org/ | تحويل تنسيق الملفات الكيميائية، وتوليد الربائط ثلاثية الأبعاد، وتحضير الربائط. |
| قاعدة بيانات OPM | جامعة ميشيغان | قاعدة بيانات ويب؛ تم الدخول إليها في الفترة من يناير إلى مايو 2026؛ https://opm.phar.umich.edu/ | توجيه البروتينات في الأغشية؛ الإحداثيات المستخدمة لمحاذاة HTR2A. |
| ParmEd | مطورو ParmEd / مفتوح المصدر | 4.x؛ https://parmed.github.io/ParmEd/html/index.html | إعادة توزيع كتلة الهيدروجين ومعالجة طوبولوجيا المحاكاة الجزيئية. |
| PyMOL | شرايدرöدينجر / مفتوح المصدر | 2.x؛ https://www.pymol.org/ | التصور البنيوي ثلاثي الأبعاد وأشكال المستقبل والربيطة. |
| بنك بيانات البروتينات RCSB | RCSB PDB | قاعدة بيانات إلكترونية؛ تم الدخول إليها في الفترة من يناير إلى مايو 2026؛ https://www.rcsb.org/ | مصدر البنى البروتينية التجريبية وإحداثيات بنك بيانات البروتينات (PDB). |
| STITCH | اتحاد STITCH (EMBL) | v5.0؛ https://stitch.embl.de/ | التنبؤ بأهداف التفاعل بين الكيماويات والبروتينات. |
| يرجى تقديم النص المراد ترجمته. | اتحاد STRING / ELIXIR | v12.0؛ https://version-12-0.string-db.org/ | بناء شبكة التفاعلات البروتينية-البروتينية وإثراء المسارات. |
| SwissADME | المعهد السويسري للمعلوماتية الحيوية (SIB) / جامعة لوزان | أداة ويب؛ تم الوصول إليها في الفترة من يناير إلى مايو 2026؛ https://www.swissadme.ch/ | واصفات المعلوماتية الكيميائية، وتنبؤات الحرائك الدوائية، وتقييم مركبات PAINS. |
| SwissTargetPrediction | المعهد السويسري للمعلوماتية الحيوية SIB / جامعة لوزان | أداة ويب؛ تم الوصول إليها في الفترة من يناير إلى مايو 2026؛ https://www.swisstargetprediction.ch/ | التنبؤ بأهداف البروتين البشرية استناداً إلى الربيطة. |
| تعيين معرفات UniProt | اتحاد UniProt | خدمة ويب؛ تم الدخول إليها في الفترة من يناير إلى مايو 2026؛ https://www.uniprot.org/id-mapping | ربط معرفات البروتين برموز الجينات الموحدة والمعتمدة من قبل لجنة تسمية الجينات البشرية (HGNC). |
| NVIDIA RTX 3080 | شركة NVIDIA Corporation | RTX 3080؛ ≥ذاكرة وصول عشوائي للفيديو (VRAM) بسعة 8 جيجابايت؛ إصدار CUDA/برنامج التشغيل غير محدد في المخطوطة | وحدة معالجة رسومات تدعم تقنية CUDA تُستخدم في محاكاة الديناميات الجزيئية. |
| وحدة معالجة رسومات (GPU) متوافقة مع CUDA | شركة NVIDIA | لم يتم تحديد إصدار مجموعة أدوات CUDA في المخطوطة؛ ≥ذاكرة وصول عشوائي للفيديو (VRAM) بسعة 8 جيجابايت | وحدة معالجة رسوميات (GPU) تدعم تقنية CUDA مع ≥ذاكرة وصول عشوائي للفيديو (VRAM) بسعة 8 جيجابايت؛ كما تطلب محطة العمل أيضاً ≥ذاكرة وصول عشوائي (RAM) بسعة 32 جيجابايت ووحدة معالجة مركزية (CPU) سداسية النواة. |
| أوبونتو لينكس (Ubuntu Linux) | شركة Canonical Ltd. / مفتوح المصدر | 22.04 LTS | نظام تشغيل Linux بنظام 64 بت. |
| Python 3.9 | مؤسسة برمجيات بايثون (Python Software Foundation) | 3.9 | بيئة برمجة عامة الغرض تُستخدم لكتابة نصوص سير العمل والتحليل. |
| مستودع التعبير الجيني (GEO) | المركز الوطني لمعلومات التقانة الحيوية (NCBI) / المكتبة الوطنية الأمريكية للطب | مستودع ويب عام؛ لم يتم تحديد إصدار البرنامج في المخطوطة | مستودع بيانات الجينوميات الوظيفية العام. |
| AutoDockTools/MGLTools | مختبر الرسوميات الجزيئية، Scripps Research | 1.5.7 | مجموعة أدوات تحضير البنية الجزيئية ومدخلات الإرساء. |
| أدوات تحليل GROMACS | فريق تطوير GROMACS / مفتوح المصدر | 2024.2 | أدوات تحليل مسارات الديناميكا الجزيئية. |
| بروتوكول CHARMM-GUI المكون من ست خطوات | CHARMM-GUI / جامعة ليهاي | بروتوكول الويب؛ تعذر استعادة الإصدار الدقيق | سير عمل قائم على الويب لتحضير وموازنة الأنظمة الجزيئية متعددة المراحل. |
| cgenff_charmm2gmx_py3.py | نص برمجي للتحويل مفتوح المصدر؛ لم يتم تحديد المصدر في المخطوطة | لم يتم تحديد الإصدار في المخطوطة | نص برمجي لتحويل توبولوجيا حقل القوة. |
| بايثون | مؤسسة برمجيات بايثون (Python Software Foundation) | 3.9 | بيئة برمجة للأغراض العامة. |
| SciPy | مجتمع SciPy / مفتوح المصدر | لم يتم تحديد الإصدار في المخطوطة | مكتبة الحوسبة العلمية. |
| scipy.stats.fisher_exact | مجتمع SciPy / مفتوح المصدر | إصدار SciPy غير محدد في المخطوطة | فيشر’تنفيذ اختبار فيشر الدقيق (Fisher's exact test). |
| R | مؤسسة R للحوسبة الإحصائية | 4.3.x | بيئة الحوسبة الإحصائية. |
| Bioconductor | مشروع Bioconductor / مفتوح المصدر | 3.18 | إطار عمل برمجيات المعلوماتية الحيوية. |
| limma | مشروع Bioconductor / مفتوح المصدر | الإصدار غير محدد في المخطوطة | حزمة تحليل التعبير الجيني التفاضلي. |
| بنجاميني–إجراء هوكبيرج | الطريقة الإحصائية | غير قابل للتطبيق (إجراء إحصائي) | طريقة تصحيح معدل الاكتشافات الخاطئة. |
| NVIDIA RTX 3080 | NVIDIA Corporation | RTX 3080؛ ≥ذاكرة وصول عشوائي للفيديو (VRAM) بسعة 8 جيجابايت؛ إصدار CUDA/برنامج التشغيل غير محدد في المخطوطة | وحدة معالجة رسومات بذاكرة فيديو لا تقل عن 8 جيجابايت. |
| وحدة معالجة رسوميات متوافقة مع CUDA | شركة NVIDIA | لم يتم تحديد إصدار مجموعة أدوات CUDA في المخطوطة؛ ≥ذاكرة وصول عشوائي للفيديو بسعة 8 جيجابايت | وحدة معالجة الرسوميات التي تدعم الحوسبة المتوازية للأغراض العامة. |
| Ubuntu Linux 22.04 LTS | شركة Canonical Ltd. / مفتوح المصدر | 22.04 LTS | نظام تشغيل لينكس (Linux) بمعمارية 64 بت. |
| TIP3P | مطورو حقل القوة CHARMM / مفتوح المصدر | TIP3P؛ لا ينطبق إصدار البرنامج | نموذج الماء الصريح ثلاثي المواقع. |
| طريقة ميكانيكا الجزيئات/مساحة السطح لـ بويسون-بولتزمان (MM/PBSA) | مطورو gmx_MMPBSA / مفتوح المصدر | gmx_MMPBSA 1.5.x | ميكانيكا الجزيئات/بواسون–طريقة بولتزمان لحساب طاقة الربط بناءً على مساحة السطح. |
المراجع
- Ford AC, Lacy BE, Talley NJ. Irritable bowel syndrome. N Engl J Med. 2017;376(26):2566–2578.
- Sperber AD, et al. Worldwide prevalence and burden of functional gastrointestinal disorders: results of the Rome Foundation Global Study. Gastroenterology. 2021;160(1):99–114.e3.
- Chang L, et al. AGA clinical practice guideline on the pharmacological management of irritable bowel syndrome with constipation. Gastroenterology. 2022;163(1):118–136.
- Lacy BE, et al. ACG clinical guideline: management of irritable bowel syndrome. Am J Gastroenterol. 2021;116(1):17–44.
- Lavelle A, Sokol H. Gut microbiota-derived metabolites as key actors in inflammatory bowel disease. Nat Rev Gastroenterol Hepatol. 2020;17(4):223–237.
- Morrison DJ, Preston T. Formation of short-chain fatty acids by the gut microbiota and their impact on human metabolism. Gut Microbes. 2016;7(3):189–200.
- Ridlon JM, et al. Consequences of bile salt biotransformations by intestinal bacteria. Gut Microbes. 2016;7(1):22–39.
- Roager HM, Licht TR. Microbial tryptophan catabolites in health and disease. Nat Commun. 2018;9(1):3294. doi:10.1038/s41467-018-05470-4.
- Krautkramer KA, Fan J, Bäckhed F. Gut microbial metabolites as multi-kingdom intermediates. Nat Rev Microbiol. 2021;19(2):77–94.
- Pittayanon R, et al. Gut microbiota in patients with irritable bowel syndrome: a systematic review. Gastroenterology. 2019;157(1):97–108.
- Hopkins AL. Network pharmacology: the next paradigm in drug discovery. Nat Chem Biol. 2008;4(11):682–690.
- O’Boyle NM, et al. Open Babel: an open chemical toolbox. J Cheminform. 2011;3:33. doi:10.1186/1758-2946-3-33.
- Daina A, Michielin O, Zoete V. SwissADME: a free web tool to evaluate pharmacokinetics, drug-likeness, and medicinal chemistry friendliness of small molecules. Sci Rep. 2017;7:42717. doi:10.1038/srep42717.
- Szklarczyk D, et al. STITCH 5: augmenting protein–chemical interaction networks with tissue and affinity data. Nucleic Acids Res. 2016;44(D1):D380–D384.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47(W1):W357–W364.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets—update. Nucleic Acids Res. 2013;41(D1):D991–D995.
- Edgar R, Domrachev M, Lash AE. Gene Expression Omnibus: NCBI gene expression and hybridization array data repository. Nucleic Acids Res. 2002;30(1):207–210.
- Swan C, et al. Identifying and testing candidate genetic polymorphisms in irritable bowel syndrome: association with TNFSF15 and TNFα. Gut. 2013;62(7):985–994.
- Ritchie ME, et al. Limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47. doi:10.1093/nar/gkv007.
- Szklarczyk D, et al. The STRING database in 2023: protein–protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 2023;51(D1):D638–D646.
- Kanehisa M, Goto S. KEGG: Kyoto Encyclopedia of Genes and Genomes. Nucleic Acids Res. 2000;28(1):27–30.
- Gillespie M, et al. The Reactome pathway knowledgebase 2022. Nucleic Acids Res. 2022;50(D1):D687–D692.
- Ashburner M, et al. Gene Ontology: tool for the unification of biology. Nat Genet. 2000;25(1):25–29.
- Gene Ontology Consortium, et al. The Gene Ontology knowledgebase in 2023. Genetics. 2023;224(1):iyad031. doi:10.1093/genetics/iyad031.
- Berman HM, et al. The Protein Data Bank. Nucleic Acids Res. 2000;28(1):235–242.
- Eberhardt J, Santos-Martins D, Tillack AF, Forli S. AutoDock Vina 1.2.0: new docking methods, expanded force field, and Python bindings. J Chem Inf Model. 2021;61(8):3891–3898.
- Trott O, Olson AJ. AutoDock Vina: improving the speed and accuracy of docking. J Comput Chem. 2010;31(2):455–461.
- Vanommeslaeghe K, et al. CHARMM general force field: a force field for drug-like molecules compatible with the CHARMM all-atom additive biological force fields. J Comput Chem. 2010;31(4):671–690.
- Huang J, MacKerell AD Jr. CHARMM36 all-atom additive protein force field: validation based on comparison to NMR data. J Comput Chem. 2013;34(25):2135–2145.
- Jorgensen WL, et al. Comparison of simple potential functions for simulating liquid water. J Chem Phys. 1983;79(2):926–935.
- Abraham MJ, et al. GROMACS: high-performance molecular simulations through multi-level parallelism from laptops to supercomputers. SoftwareX. 2015;1–2:19–25.
- Jo S, Kim T, Iyer VG, Im W. CHARMM-GUI: a web-based graphical user interface for CHARMM. J Comput Chem. 2008;29(11):1859–1865.
- Wu EL, et al. CHARMM-GUI Membrane Builder toward realistic biological membrane simulations. J Comput Chem. 2014;35(27):1997–2004.
- Lomize MA, et al. OPM database and PPM web server: resources for positioning proteins in membranes. Nucleic Acids Res. 2012;40(D1):D370–D376.
- Darden T, York D, Pedersen L. Particle mesh Ewald: an N log(N) method for Ewald sums in large systems. J Chem Phys. 1993;98(12):10089–10092.
- Hess B, Bekker H, Berendsen HJC, Fraaije JGEM. LINCS: a linear constraint solver for molecular simulations. J Comput Chem. 1997;18(12):1463–1472.
- Valdés-Tresanco MS, Valdés-Tresanco ME, Valiente PA, Moreno E. gmx_MMPBSA: a new tool to perform end-state free-energy calculations with GROMACS. J Chem Theory Comput. 2021;17(10):6281–6291.
- Fiorucci S, Distrutti E. Bile acid-activated receptors, intestinal microbiota, and the treatment of metabolic disorders. Trends Mol Med. 2015;21(11):702–714.
- Wahlström A, Sayin SI, Marschall HU, Bäckhed F. Intestinal crosstalk between bile acids and microbiota and its impact on host metabolism. Cell Metab. 2016;24(1):41–50.
- Gershon MD, Tack J. The serotonin signaling system: from basic understanding to drug development for functional gastrointestinal disorders. Gastroenterology. 2007;132(1):397–414.
- Kim K, et al. Structure of a hallucinogen-activated Gq-coupled 5-HT2A serotonin receptor. Cell. 2020;182(6):1574–1588.e19.
- Ballesteros JA, Weinstein H. Integrated methods for the construction of three-dimensional models and computational probing of structure–function relations in G protein-coupled receptors. In: Sealfon SC, editor. Receptor Molecular Biology. Methods in Neurosciences. Vol. 25. San Diego: Academic Press; 1995. p. 366–428.
- McCorvy JD, Roth BL. Structure and function of serotonin G protein-coupled receptors. Pharmacol Ther. 2015;150:129–142.
- Klauda JB, et al. Update of the CHARMM all-atom additive force field for lipids: validation on six lipid types. J Phys Chem B. 2010;114(23):7830–7843.
- Lee J, et al. CHARMM-GUI input generator for NAMD, GROMACS, AMBER, OpenMM, and CHARMM/OpenMM simulations using the CHARMM36 additive force field. J Chem Theory Comput. 2016;12(1):405–413.
- Genheden S, Ryde U. The MM/PBSA and MM/GBSA methods to estimate ligand-binding affinities. Expert Opin Drug Discov. 2015;10(5):449–461.
- Kollman PA, et al. Calculating structures and free energies of complex molecules: combining molecular mechanics and continuum models. Acc Chem Res. 2000;33(12):889–897.
- Cryan JF, et al. The microbiota–gut–brain axis. Physiol Rev. 2019;99(4):1877–2013.
- Koh A, De Vadder F, Kovatcheva-Datchary P, Bäckhed F. From dietary fiber to host physiology: short-chain fatty acids as key bacterial metabolites. Cell. 2016;165(6):1332–1345.
- Tan J, et al. The role of short-chain fatty acids in health and disease. Adv Immunol. 2014;121:91–119.
- Agus A, Planchais J, Sokol H. Gut microbiota regulation of tryptophan metabolism in health and disease. Cell Host Microbe. 2018;23(6):716–724.