يتضمن سير العمل الموحد لتحضير عينات العظام المثبتة بالفورمالين والمطمورة في البارافين لتحليلات الترانسكريبتوميات المكانية خطوة لإزالة التكلس باستخدام EDTA لمدة 10 أيام للحفاظ على سلامة الـ RNA. وتساعد نقاط تفتيش مراقبة الجودة الرئيسية في تحديد ما إذا كانت العينات تستوفي المتطلبات اللازمة لتحليل التعبير الجيني المكاني في المراحل اللاحقة.
مقالة منهجية
تحضير عينات نخاع العظم المثبتة بالفورمالين والمطمورة في البارافين لتحليل الترانسكريبتوميكس المكاني باستخدام إزالة التكلس القائمة على EDTA
في هذه المقالة
ملخص
الملخص
يُعد نخاع العظم (BM) بنية معقدة وديناميكية تؤثر فيها العلاقات المكانية على سلوك الخلايا وإشاراتها ووظائفها. وبسبب ذلك، فإن فهم الديناميكيات الكاملة للتفاعلات الخلوية يتطلب تقنيات مكانية تكميلية تعمل على حفظ ورسم خريطة لبنية المجموعات الخلوية in situ. وعلى الرغم من التقدم الكبير في تقنيات الخلية الواحدة التي ساهمت في فهم التباين النسخي لأنسجة نخاع العظم السليمة والمصابة، إلا أن التنظيم المكاني لأنواع الخلايا المختلفة، والبرامج التنظيمية الخاصة بالبيئة الخلوية (niche)، وتفاعلاتها، لا تزال بحاجة إلى مزيد من الدراسة. وقد مكنت التطورات الأخيرة في علم النسخ المكاني (spatial transcriptomics) من إجراء تحليل غير متحيز للتعبير الجيني مع سياق مكاني عبر الأنسجة المختلفة، مما يجعل هذه التقنيات مكملة لطرق الخلية الواحدة التي تفتقر إلى الدقة المكانية. وبينما استُخدم علم النسخ المكاني على نطاق واسع في الأنسجة الرخوة، فإن استخدامه في الأنسجة الممعدنة مثل نخاع العظم لا يزال محدوداً بسبب التحديات المرتبطة بمعالجة أنسجة العظام. لقد استُخدم البروتوكول المقدم هنا لتحضير عينات مثبتة بالفورمالين ومطمورة في البارافين (FFPE) من أنسجة فئران وبشر، سواء كانت سليمة أو مصابة. يتضمن البروتوكول خطوة إزالة تكلس تعتمد على حمض إيثيلين ثنائي أمين رباعي الخليك (EDTA) لمدة 10 أيام للحفاظ على سلامة الحمض النووي الريبوزي (RNA) ودعم استخدام علم النسخ المكاني في عينات العظام الطويلة. يصف هذا البروتوكول تحضير عينات نخاع العظم لتحليل النسخ المكاني، بما في ذلك معالجة الأنسجة وحفظها وتقطيعها، بالإضافة إلى خطوات تقييم الجودة الأساسية، مثل تقييم سلامة المقاطع، ومورفولوجيا الأنسجة، وجودة الـ RNA. كما يدعم سير العمل هذا تحديد أنواع الخلايا والدمج مع بيانات النسخ للخلية الواحدة لتوصيف التركيب الخلوي، وتحديد التفاعلات بين الخلايا، وتصور التوزيع المكاني للخلايا المتباينة نسخياً في الحالات السليمة والمرضية. وبشكل عام، يقوم سير العمل هذا بتجهيز الأنسجة الممعدنة بالكامل، السليمة والخبيثة، لتحليل النسخ المكاني مع الحفاظ على بنية نخاع العظم.
المقدمة
يعد نخاع العظم (BM) عضواً شديد التعقيد ومقسماً إلى حجيرات، حيث يعمل كالموقع الرئيسي لعملية تكوين الدم ونضج الخلايا المناعية1,2. وتتكون هذه الأنسجة غير المتجانسة من مجموعة متنوعة من سلالات الخلايا المكونة للدم، والخلايا الميزنشيمية، والخلايا البطانية، والخلايا المناعية التي تتعايش في بيئة مجهرية ثلاثية الأبعاد متخصصة ومنظمة للغاية3,4. وضمن هذه البيئة المجهرية، تشغل كل مجموعة خلوية مناطق تشريحية متميزة، ويلعب السياق المكاني دوراً أساسياً في تنظيم السلوك الخلوي والإشارات والوظائف4,5. كما أن القرب الفيزيائي من تراكيب محددة، مثل العظم التربيقي أو الشبكات الوعائية، يتحكم في العمليات الفسيولوجية الأساسية، بما في ذلك الحفاظ على سكون الخلايا الجذعية المكونة للدم (HSC) وإعادة تشكيل العظام6,7. وبناءً على ذلك، فإن هذه البيئة المجهرية الديناميكية والتفاعلات المنظمة بدقة بين مكوناتها الخلوية والسدوية تشكل الشبكات التنظيمية التي تحافظ على التوازن الداخلي وتؤثر في تطور الأورام الخبيثة في الدم8,9,10,11,12,13.
أحدثت التطورات في تسلسل الحمض النووي الريبوزي أحادي الخلية (scRNA-seq) ثورة في فهمنا للتنوع الخلوي في نخاع العظم (BM)، مما مكن من اكتشاف أنواع فرعية من الخلايا لم تكن معروفة سابقاً وتفاعلاتها المتوقعة داخل البيئة الموضعية (niche)3,10,11,12,14,15,16. ومع ذلك، فإن ترانسكريبتوميكا الخلية الواحدة، رغم تقديمها لمعلومات عالية الدقة حول المكونات الفردية للبيئة الموضعية المكونة للدم، إلا أنها محدودة بطبيعتها بسبب عملية هضم الأنسجة، التي تفصل الخلايا عن بيئتها الأصلية وقد تغير حالتها الطبيعية17، وبسبب الافتقار إلى السياق المكاني الذي يحدد تنظيم أنسجة العظام4,18. وهذا الفقدان للسياق الموضعي يجعل من المستحيل تحديد مكان استقرار مجموعات خلوية محددة ومتميزة ترانسكريبتومياً بدقة أو كيفية تفاعلها مع الخلايا المجاورة19. علاوة على ذلك، غالباً ما يتم تفكيك أنسجة العظام الكثيفة جزئياً فقط، مما يؤدي إلى تمثيل ناقص لمجموعات خلوية رئيسية، مثل الخلايا العظمية والخلايا الدهنية، في مجموعات بيانات scRNA-seq وتمثيل متحيز لعدم تجانس الأنسجة20,21. تسمح الترانسكريبتوميكا المكانية بدراسة التعبير الجيني in situ، ضمن مقاطع نسيجية محفوظة مكانياً، وبالتالي استعادة المعلومات السياقية ومعالجة قيود تقنيات الخلية الواحدة8,19,22,23,24,25,26. تمثل هذه التكنولوجيا تقدماً أساسياً في هذا المجال، حيث تتيح تحديد الموضع المكاني بدقة والتنظيم الهيكلي لمختلف المجموعات الخلوية التي تشكل نخاع العظم، وهو أمر لا غنى عنه لفهم تفاعلاتها وأدوارها الوظيفية داخل بيئتها المجهرية الأصلية8,26. وعلاوة على ذلك، في سياق المرض، تمكن الترانسكريبتوميكا المكانية الباحثين والأطباء من سد الفجوة بين علم الأمراض التقليدي وعلم الجينوم عالي الإنتاجية، مما يسمح لهم بدمج البيانات الجزيئية فوق الصور المورفولوجية1,8. يمكن تصنيف تقنيات الترانسكريبتوميكا المكانية إلى مجموعتين رئيسيتين: الطرق القائمة على التسلسل والطرق القائمة على التصوير17,24. تقوم المنصات القائمة على التسلسل، مثل Visium وCurio Seeker وGeoMx Digital Spatial Profiler (GeoMx DSP) وStereo-seq وDeterministic Barcoding in Tissue sequencing (DBiT-seq) وOpen-ST مفتوحة المصدر، بالتقاط mRNA على مصفوفات أو حبيبات مشفرة مكانياً قبل إجراء تسلسل الجيل التالي. أما الطرق القائمة على التصوير، بما في ذلك Multiplexed Error-Robust Fluorescence in Situ Hybridization (MERFISH) وMolecular Cartography وRNAscope وCosMX وXenium، فتقوم بتصوير الترانسكريبتات مباشرة in situ من خلال التهجين المتعدد أو كيمياء مسابر القفل (padlock probe)27,28. وبدلاً من ذلك، يمكن تصنيف المنصات إلى مستهدفة أو غير مستهدفة، اعتماداً على ما إذا كانت تتطلب كشفاً قائماً على المسابر17,24.
لقد تم تطبيق طرق علم النسخ المكاني (Spatial transcriptomics) بسهولة على الأنسجة الرخوة، مثل الدماغ والقلب والكبد، حيث يكون إنشاء مقاطع نسيجية سليمة أمراً بسيطاً29,30,31. وفي المقابل، فإن تنفيذ علم النسخ المكاني في العظام يمثل تحدياً أكبر بكثير نظراً لطبيعتها المعدنية، والتي تتطلب عملية إزالة التكلس32,33، وهي الإزالة المنضبطة لفوسفات الكالسيوم، مما يجعل النسيج ليناً بما يكفي للتقطيع وللتحليلات النسيجية أو الجزيئية اللاحقة8,20,23,34. وتعتمد طرق إزالة التكلس التقليدية المستخدمة روتينياً في الممارسة السريرية عادةً على محاليل حمضية قاسية مثل حمض الهيدروكلوريك، أو حمض النيتريك، أو حمض الفورميك، أو حمض الفوسفوريك، والتي تؤدي إلى تدهور شديد في سلامة الـ RNA وتشويه المورفولوجيا الخلوية35,36. ويؤدي هذا التدهور الجزيئي إلى خفض نسبة الإشارة إلى الضجيج (signal-to-noise ratio) في المقاييس المكانية، مما ينتج عنه غالباً معدلات كشف جيني منخفضة بشكل غير مقبول مقارنة بالأنسجة الرخوة8,10. ويسلط هذا القصور الضوء على الحاجة إلى سير عمل معياري لإزالة التكلس يحافظ بشكل موثوق على سلامة الـ mRNA في العينات المعدنية من أجل التحليلات المكانية القائمة على التسلسل8,20.
يقدم هذا البروتوكول سير عمل موحد لتحضير عينات نخاع العظم (BM) المثبتة بالفورمالين والمطمورة في البارافين (FFPE) من أجل النسخ النصي المكاني (spatial transcriptomics)، وهو ما طبقه سابقاً Muiños-Lopez وزملاؤه8. يتضمن سير العمل خطوة إزالة التكلس لمدة 10 أيام باستخدام حمض إيثيلين ثنائي أمين رباعي حمض الأسيتيك (EDTA) عند درجة حموضة (pH) مضبوطة. وبخلاف الأحماض القوية، يعمل EDTA كعامل مخلبي لطيف يحافظ على البنية المجهرية وجودة الأحماض النووية، مما يدعم استخدامه في التطبيقات الجزيئية8,20,33,36,37. وكإثبات للمفهوم، تم تنفيذ البروتوكول على عينات من أنسجة عظمية من نماذج فئران سليمة وأخرى مصابة بالورم النخاعي المتعدد (MM)، بالإضافة إلى عينات من نخاع العظم البشري من أشخاص سليمين ومصابين، ثم خضعت العينات لاحقاً للتسلسل باستخدام منصة Visium Spatial Gene Expression38. يتضمن سير العمل إجراءات موحدة للحصول على الأنسجة من عينات العظام البشرية وعينات الفئران، والتثبيت، وإزالة التكلس، والتجفيف، والطمر في البارافين، والتقطيع، يليه مسار شامل لمراقبة الجودة يشمل تقييم سلامة المقاطع، والتصبيغ بالهيماتوكسيلين والإيوسين (H&E)، وتقييم جودة RNA (DV200)، والفلورة المناعية (IF) الاختيارية للتحقق من أنواع الخلايا. تضمن هذه الخطوات التحضيرية انتقال المقاطع عالية الجودة فقط إلى سير عمل النسخ النصي المكاني اللاحق، بما في ذلك المعالجة المسبقة لمقاطع الأنسجة، وبناء المكتبة، والتسلسل، ومراقبة جودة البيانات وتحليلها لاحقاً.
يدعم هذا الإجراء الموحد تحضير وتقييم جودة عينات نخاع العظم (BM) البشرية والفأرية لتحليل النسخ المكاني. ويهدف إلى تسهيل الدراسات الخاصة بالبرامج التنظيمية المحددة للمناشئ (niche) في الاضطرابات الدموية والهيكلية.
البروتوكول
أُجريت جميع التجارب على الحيوانات وفقًا للتوجيه الأوروبي 2010/63/EU بشأن حماية الحيوانات المستخدمة للأغراض العلمية، وقد تمت الموافقة عليها من قبل لجنة أخلاقيات الحيوان بجامعة نافارا (Comité de Ética para la Experimentación Animal؛ البروتوكولات CEEA082-20 وCEEA039-20). كما تم تنفيذ رعاية الحيوانات ومناولتها والقتل الرحيم بما يتوافق مع التشريعات الإسبانية لتقليل الألم والمعاناة.
تمت الموافقة على الدراسة البشرية من قبل لجنة أخلاقيات البحث في كلية الطب بجامعة نافارا (Comisión de Ética de Investigación, CEI؛ المشروعان 202.10mod1 و 2023.172) ولجنة أخلاقيات البحث في الخدمة الصحية في نافارا (CEIm–Departamento de Salud de Navarra؛ PI_202/92 MS-1). وقد أُجريت جميع الإجراءات التي شملت مشاركين بشريين وفقاً للمبادئ الأخلاقية لإعلان هلسنكي. كما تم التعامل مع البيانات الشخصية بسرية تامة امتثالاً للقانون العضوي الإسباني 3/2018 بشأن حماية البيانات الشخصية وضمان الحقوق الرقمية والقانون الإسباني 14/207 بشأن الأبحاث الطبية الحيوية.
ملاحظة: تتوفر قائمة مفصلة بالكواشف والمعدات المستخدمة في هذه الدراسة في جدول المواديوضح المخطط التوضيحي سير العمل التجريبي الشامل لتنفيذ الترانسكريبتوميات المكانية في أنسجة العظام في الشكل 1 وتم تنظيمها في ثلاث مراحل تشغيلية: الحصول على العينات، ومراقبة الجودة (QC)، والتوصيف الترانسكريبتومي المكاني. يشمل الحصول على العينات جمع شظايا عظمية بشرية أو فئرانية، يليه التثبيت، وإزالة الكالسيوم باستخدام EDTA، والتجفيف، والطمر في البارافين، والتقطيع وتحضير الشرائح. وتقيم مرحلة مراقبة الجودة السلامة النسيجية والحفاظ على الحمض النووي الريبي (RNA). ثم تخضع المقاطع العظمية المعتمدة لعملية نفاذية الأنسجة على الشريحة، وتحضير المكتبة، والتسلسل، وتحليل البيانات.
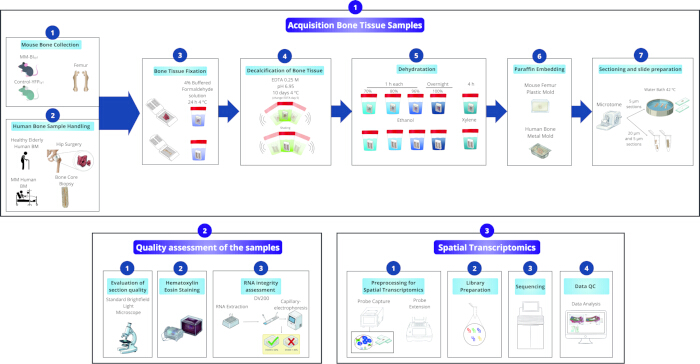
شكل 1سير عمل جمع العينات والتحضير القائم على EDTA لأنسجة العظام لدى الفئران والبشر. يتم جمع عظام الفخذ من الفئران وعينات عظام بشرية، ثم تثبيتها، وإزالة الكالسيوم منها باستخدام EDTA، وتجفيفها، وطمرها في البارافين، وتقطيعها إلى شرائح. وتُقيّم جودة العينات بواسطة صبغـ...&صبغ H&E وتقييم سلامة الحمض النووي الريبوزي (DV20)، يليه المعالجة المسبقة للأنسجة في النسخ الترانسكريبتومي المكاني، وإعداد المكتبة، والتسلسل، ومراقبة جودة البيانات. الاختصارات: BM = نخاع العظم؛ DV20 = نسبة شظايا الحمض النووي الريبوزي التي يزيد طولها عن 200 نوكليوتيد؛ EDTA = حمض إيثيلين ثنائي الأمين رباعي حمض الأسيتيك؛ H&E = الهيماتوكسيلين والإيوزين.&E = الهيماتوكسيلين والإيوزين؛ QC = مراقبة الجودة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
1. الحصول على عينات الأنسجة العظمية ومعالجتها
- جمع عظام الفئران
- تخدير الحيوانات باستخدام isoflurane بنسبة 5% والتأكد من فقدان المنعكسات.
- بمجرد التخدير الكامل، يتم إجراء القتل الرحيم عن طريق خلع الفقرات العنقية وفقاً للإرشادات المؤسسية والتنظيمية.
ملاحظة: يجب تنفيذ القتل الرحيم من قبل موظفين مدربين، ويجب تأكيد الوفاة قبل البدء في جمع الأنسجة. - تطهير الجلد عن طريق رش ethanol بنسبة 70% على السطح الظهري للفأر، وباستخدام مقص جراحي، يتم عمل شق صغير لإزالة الجلد بعناية وكشف الأطراف الخلفية.
- تشريح الأطراف الخلفية عن طريق القطع فوق مفصل الورك ونقلها إلى أنبوب سعة 50 mL يحتوي على 10 mL من Dulbecco’s Phosphate Buffered Saline (DPBS) البارد. يوضع الأنبوب على الثلج.
- إزالة العضلات والأنسجة الضامة الملتصقة باستخدام ملقط معقم ومشرط.
- نقل العظام إلى حاوية معقمة سعة 50 mL مملوءة مسبقاً بـ DPBS نظيف وبارد، ثم وضع الحاوية على الثلج.
- البدء فوراً في تثبيت الأنسجة العينية للحفاظ على سلامة الأنسجة.
- التعامل مع عينات العظام البشرية
- استلام خزعات لبية عظمية أو شظايا عظمية جراحية في حاويات معقمة سعة 10 mL.
- نقل شظايا العظام إلى حاوية نظيفة ومعقمة سعة 10 mL مملوءة مسبقاً بـ DPBS بارد، ثم وضعها على الثلج.
- البدء فوراً في تثبيت العينات للحفاظ على سلامة الأنسجة.
تنبيه: يجب التعامل مع العينات البشرية تحت ظروف BSL 2.
- تثبيت أنسجة العظام
- أخذ الحاوية سعة 50 mL أو 10 mL التي تحتوي على عينة العظام والتخلص من DPBS.
- تسمية الكاسيتات البلاستيكية ووضع عينات العظام في كاسيتات فردية. تُغلق الأغطية بإحكام لمنع فقدان الأنسجة أثناء المعالجة اللاحقة.
ملاحظة: بالنسبة لعينات الفئران، توضع عظمة واحدة في كل كاسيت. أما بالنسبة لعينات العظام البشرية، فإذا لزم الأمر، يُستخدم مشرط معقم لقطع النسيج إلى شظايا صغيرة بما يكفي لتناسب الكاسيتات القياسية، وتوضع شظية واحدة في كل كاسيت. إذا كانت عينات العظام البشرية صلبة جداً بحيث يصعب تقطيعها في هذه المرحلة، يمكن تركها كما هي ونقلها إلى محلول إزالة الكالسيوم؛ وبمجرد إزالة الكالسيوم، يمكن قطع النسيج الذي أصبح ليناً إلى شظايا ذات أحجام مناسبة ووضعها في كاسيتات مسماة. - إضافة محلول formaldehyde منظم بنسبة 4% بنسبة عينة إلى مثبت تبلغ 1:20 وتحضين العينة لمدة 24 h عند 4 °C.
تنبيه: يجب التعامل مع المثبت داخل غطاء fume hood كيميائي بسبب سميته وأبخرته المتطايرة.
ملاحظة: تجنب التثبيت المفرط (>48 h)، والذي يقلل من سلامة RNA في سير عمل FFPE39.
- إزالة الكالسيوم من أنسجة العظام المعدنية
- التخلص من الفورمالين وغسل عينة العظام بماء فائق النقاء. تُشطف بالماء، وتُرج لفترة وجيزة، ثم يتم التخلص منه لإزالة أي بقايا فورمالين متبقية.
- تحضير محلول EDTA بتركيز 0.25 M في ماء فائق النقاء وضبط pH على 6.95.
ملاحظة: على الرغم من أن EDTA غالباً ما يتم ضبط pH له عند 8.0 في بروتوكولات إزالة الكالسيوم التقليدية، فإن سير العمل هذا يستخدم EDTA عند pH تقريبي 6.95 لدعم عملية المخلبية (chelation) الفعالة مع الحفاظ على مورفولوجيا الأنسجة وجدة RNA8. - إضافة محلول EDTA إلى الحاوية التي تحتوي على عينة العظام والتحضين لمدة 10 أيام عند 4 °C مع رج خفيف.
ملاحظة: بالنسبة لعينات الفئران، عادة ما يكون 50 mL تقريباً من محلول EDTA كافياً. أما بالنسبة لعينات العظام البشرية، فيُستخدم عادةً 10 mL تقريباً. ومع ذلك، يمكن تعديل هذا الحجم بناءً على حجم العظم لضمان الغمر الكامل وإزالة الكالسيوم بفعالية. - بعد 5 أيام من إزالة الكالسيوم، يتم التخلص من محلول EDTA واستبداله بنفس الحجم من EDTA طازج، لأن سعة المخلبية تصبح مشبعة بمرور الوقت. يستمر التحضين تحت نفس الظروف.
- بعد 10 أيام من التحضين، يتم التخلص من محلول EDTA وتقييم ما إذا كانت عملية إزالة الكالسيوم قد اكتملت.
- عمل قطع صغير بمشرط معقم أو إدخال إبرة معقمة دقيقة في زاوية أو منطقة محيطية من النسيج، مع اختيار منطقة ذات أهمية تحليلية منخفضة دائماً لتجنب تغيير المناطق المستهدفة. توضع العظمة على طبق Petri معقم لتثبيت العينة أثناء القطع أو إدخال الإبرة. إذا أمكن قطع النسيج بسهولة أو اخترقت الإبرة بأقل مقاومة، فإن العينة منزوعة الكالسيوم بشكل كافٍ.
- في حالة عظام الفخذ للفئران، يتم ثني العظم بلطف باستخدام الملقط لتقييم المرونة، وهي مؤشر موثوق على الإزالة الكاملة للمعادن.
ملاحظة: تعتمد مدة خطوة إزالة الكالسيوم على حجم وسماكة عينة العظم، وكذلك حجم EDTA المستخدم. إذا ظل العظم صلباً بعد فترة التحضين الأولية، تستمر عملية إزالة الكالسيوم حتى يصبح النسيج ليناً بما يكفي ليُقطع بسهولة. قد يؤدي الإطالة المفرطة إلى الإضرار بجودة الأنسجة وسلامة RNA، لذا يجب أن يقتصر التمديد على الحد الأدنى من الوقت المطلوب لتحقيق الليونة الكافية20.
- نزع الماء (Dehydration)
- الغسل عن طريق إضافة ماء فائق النقاء إلى الحاوية التي تحتوي على عينة العظام، ثم التحضين لمدة 5 min عند 4 °C مع الرج.
- التخلص من الماء واستبداله بمحلول ethanol بنسبة 70%. التحضين لمدة 1 h عند 4 °C.
ملاحظة: يمكن أن تكون هذه الخطوة بمثابة نقطة توقف. يمكن تخزين العينات في ethanol بنسبة 70% عند 4 °C قبل الانتقال إلى الخطوات التالية. لم يتم التحقق تجريبياً من أقصى مدة تخزين في هذا البروتوكول، لذا يجب على المستخدمين المضي قدماً وفقاً للممارسات القياسية في مختبراتهم. - نزع الماء من العينة بالتتابع في تركيزات متزايدة من ethanol (70%، 80%، 96%؛ لمدة 1 h لكل منها عند 4 °C)، يليه ethanol بنسبة 10% طوال الليل عند 4 °C.
- التخلص من ethanol بنسبة 10% واستبداله بـ xylene. التحضين لمدة 4 h في درجة حرارة الغرفة (RT).
- التخلص من xylene ووضع كاسيت العينة في وعاء زجاجي يحتوي على بارافين نظيف ومذاب. التحضين في البارافين المذاب طوال الليل عند 60 °C.
ملاحظة: يمكن استخدام أوقات تغل أقصر عند توفر أنظمة معالجة مدعومة بالتفريغ (vacuum-assisted)، حيث تسهل هذه الأجهزة تغل البارافين بشكل أكثر كفاءة40,41,42.
تنبيه: يجب تنفيذ جميع الخطوات التي تتضمن xylene ومحاليل ethanol المتدرجة داخل غطاء fume hood كيميائي لضمان التهوية المناسبة وتقليل التعرض للأبخرة السامة والقابلة للاشتعال.
- الطمر في البارافين
ملاحظة: تُنظف أسطح محطة الطمر بمحلول إزالة تلوث RNase لمنع تحلل RNA.- تشغيل محطة الطمر وتسخين خزان البارافين، وحمام بارافين الكاسيتات، وحمام بارافين القوالب، ولوحة تسخين القوالب مسبقاً إلى 60 °C. تفعيل اللوحة الباردة لتبرد قبل الطمر.
- ترك البارافين ليذوب تماماً، ثم وضع الكاسيتات التي تحتوي على عينات متغلغلة بالبارافين في حمام بارافين الكاسيتات. التحضين لمدة 2 h لضمان التخلص الكامل من xylene قبل الطمر.
- وضع جميع القوالب اللازمة في حمام بارافين القوالب.
ملاحظة: بالنسبة للعينات البشرية، تُستخدم قوالب طمر معدنية قياسية. أما بالنسبة لعينات الفئران، فتُستخدم قوالب طمر بلاستيكية متوافقة مع منصة Visium تتضمن تجويفاً مربعاً بأبعاد مناسبة لوضع المقاطع بشكل صحيح على شرائح Visium. نظراً لأن عظام الفئران الكاملة لا تتناسب تماماً مع التجويف المربع لهذه القوالب، يتم قطع العظام مباشرة قبل الطمر باستخدام مشرط معقم للحصول على شظايا بالحجم المناسب. يمكن طمر شظية عظمية واحدة أو اثنتين في كل قالب، اعتماداً على أبعادهما. - إضافة طبقة أساسية رقيقة من البارافين الطازج عن طريق توزيع البارافين المذاب من المخرج المركزي لمحطة الطمر.
- فتح الكاسيت ونقل النسيج بلطف من الكاسيت إلى القالب باستخدام ملقط دافئ.
- وضع القالب المملوء بالبارافين على لوحة تسخين القوالب، وبينما يظل البارافين سائلاً، يتم توجيه النسيج في مستوى القطع المطلوب باستخدام ملقط دافئ.
- وضع القالب على السطح البارد لمحطة الطمر لتثبيت وضع شظية العظم لفترة وجيزة.
- ملء القالب تماماً بالبارافين المذاب من الموزع، مع التأكد من تغطية النسيج بالكامل وعدم وجود فقاعات كبيرة.
- وضع الكاسيت المسمى فوق القالب بحيث يشكل قاعدة كتلة البارافين.
- نقل القالب مع الكاسيت الملحق به إلى اللوحة الباردة بمحطة الطمر. ترك البارافين يتصلب تماماً لمدة 10 min، حتى تصبح الكتلة معتمة وصلبة.
- بمجرد أن تتصلب، تُزال كتلة البارافين من القالب وتُخزن عند 4 °C حتى مرحلة التقطيع.
ملاحظة: يمكن أن تكون هذه الخطوة بمثابة نقطة توقف. يمكن تخزين كتلة البارافين عند 4 °C؛ ومع ذلك، كلما أمكن، يجب إجراء تقطيع الأنسجة وتحليلات النسخ المكاني اللاحقة في أقرب وقت عملي بعد الطمر لتقليل تحلل RNA أثناء التخزين43,4.
- التقطيع وتحضير الشرائح
ملاحظة: يُنظف الميكروتوم وحمام الماء بمحلول إزالة تلوث RNase لمنع تحلل RNA.- ملء حمام الماء بماء مقطر وتسخينه مسبقاً إلى 42 °C. تشغيل الميكروتوم وتركيب شفرة جديدة. تسمية شرائح المجهر بقلم رصاص.
- تثبيت كتلة البارافين في حامل العينة، مع التأكد من توجيه الكاسيت وفقاً لمستوى القطع الطولي المطلوب.
ملاحظة: تحضير كيس بلاستيكي مملوء بالثلج، وعندما يصبح القطع صعباً بسبب ليونة البارافين، يوضع كيس الثلج مباشرة فوق الكتلة وهي مثبتة في الميكروتوم، وتُثبت برباط مطاطي لعدة دقائق لتقسية البارافين وتحسين جودة المقاطع. - ضبط سمك الميكروتوم على 20 µm وإجراء قطعات التشذيب.
- تغيير إعداد الميكروتوم إلى 5 µm. جمع أربعة مقاطع بسماكة 5 µm في أنبوب ميكروسنتريفيو سعة 1.5 mL خالٍ من RNase ومسمى. يُحفظ الأنبوب على الثلج الجاف ويُخزن عند -80 °C.
- الاستمرار في التقطيع بسماكة 5 µm وتعويم الشرائط في حمام الماء. بمجرد أن يتمدد المقطع بالكامل ويخلو من التجاعيد، يتم التقاطه بالشريحة المسماة.
- عند كل عدد محدد من المقاطع (على سبيل المثال، كل 5-10 شرائط، اعتماداً على حجم النسيج)، يتم جمع 4 مقاطع إضافية بسماكة 5 µm في أنبوب جديد مسمى سعة 1.5 mL. تكرر هذه العملية حتى الحصول على إجمالي ثلاثة أنابيب سعة 1.5 mL تحتوي على مقاطع بسماكة 5 µm.
ملاحظة: إذا تشقق النسيج أو انكسر أو تعذر الحصول عليه في مقطع مستمر، فإن العينة ليست منزوعة الكالسيوم بالكامل وتتطلب وقتاً إضافياً لإزالة الكالسيوم. يتم استعادة العينة عن طريق عكس خطوات سير العمل حتى الوصول إلى مرحلة إزالة الكالسيوم. للقيام بذلك، يتم صهر كتلة البارافين عند 60 °C لمدة ساعتين تقريباً، ونقل العينة إلى xylene (لمدة 2 h). ثم إعادة ترطيب العينة عبر محاليل ethanol متدرجة (10%، 96%، 80%، 70%) يليه ماء مقطر. تعاد العينة المعاد ترطيبها إلى EDTA طازج بتركيز 0.25 M (pH 6.95) وتمدد فترة إزالة الكالسيوم حسب الحاجة قبل المتابعة في نزع الماء والطمر مرة أخرى والتقطيع. يجب استخدام إجراء الاستعادة هذا كخيار أخير فقط، لأن عكس معالجة FFPE قد يؤثر على سلامة RNA.
- عند كل عدد محدد من المقاطع (على سبيل المثال، كل 5-10 شرائط، اعتماداً على حجم النسيج)، يتم جمع 4 مقاطع إضافية بسماكة 5 µm في أنبوب جديد مسمى سعة 1.5 mL. تكرر هذه العملية حتى الحصول على إجمالي ثلاثة أنابيب سعة 1.5 mL تحتوي على مقاطع بسماكة 5 µm.
- وضع الشرائح في فرن عند 37 °C طوال الليل لتبخير أي ماء متبقٍ، ثم تخزينها عند 4 °C.
- لتحسين التصاق الأنسجة، يمكن اختيارياً خبز الشرائح لمدة 3 h عند 42 °C قبل تحضينها طوال الليل عند 37 °C.
ملاحظة: هذه الخطوة ليست ضرورية بشكل عام عند استخدام الشرائح الزجاجية المدرجة في جدول المواد، حيث توفر هذه الشرائح التصاقاً قوياً وعادة ما تظل الأنسجة مرتبطة بإحكام طوال المعالجة. يمكن أن تكون هذه الخطوة بمثابة نقطة توقف. يمكن تخزين الشرائح عند 4 °C؛ ومع ذلك، كلما أمكن، يجب إجراء تحليلات النسخ المكاني اللاحقة في أقرب وقت عملي بعد الطمر لتقليل تحلل RNA أثناء التخزين43,4.
2. تقييم جودة العينة
- تقييم جودة المقاطع
- افحص جميع المقاطع واحداً تلو الآخر تحت مجهر ضوئي قياسي ذو حقل مضيء (4×–10×). عاين كل شريحة للتأكد من أن المقاطع ليست مجزأة وسجل جودة كل مقطع.
ملاحظة: تحقق من وجود ثنيات، أو تجاعيد، أو انضغاط، أو علامات اهتزاز (chatter marks)، والتي قد تشير إلى مشكلات في صلابة البارافين، أو حدة الشفرة، أو عدم اكتمال عملية إزالة الكالسيوم. تحقق من عدم فقدان أي مناطق من النسيج بسبب الانفصال أثناء عملية التقطيع أو النقل إلى حمام الماء. - اختر المقاطع الأفضل حفظاً لإجراء تحليل الترانسكريبتوميكس المكاني (الأكثر اكتمالاً، والأفضل من حيث المورفولوجيا).
- حدد المقاطع المتتالية المجاورة للمقاطع المختارة واحتفظ بها لصبغة الهيماتوكسيلين والإيوسين (H&E) والفلورة المناعية (IF)، لضمان أن تكون الصورة المصبوغة مطابقة قدر الإمكان للنسيج الذي سيتم تسلسله.
- افحص جميع المقاطع واحداً تلو الآخر تحت مجهر ضوئي قياسي ذو حقل مضيء (4×–10×). عاين كل شريحة للتأكد من أن المقاطع ليست مجزأة وسجل جودة كل مقطع.
- صبغة H&E لسلامة الأنسجة
- ضع الشرائح في رف صبغ زجاجي وحضنها لمدة 15 دقيقة عند 60 °C.
- انقل الرف إلى جِرار صبغ زجاجية تحتوي على xylene لمدة 15 دقيقة.
- أعد ترطيب المقاطع بنقل الرف عبر جِرار صبغ تحتوي على إيثانول بتركيزات 10%، 96%، 80%، و70%، مع التحضين لمدة 5 دقائق في كل محلول.
تنبيه: يجب تنفيذ جميع الخطوات التي تتضمن xylene ومحاليل الإيثانول المتدرجة داخل خزانة أبخرة كيميائية لضمان التهوية المناسبة وتقليل التعرض للأبخرة السامة والقابلة للاشتعال. - اغسل الشرائح لمدة 5 دقائق في جرة صبغ مملوءة بالماء.
- اغمر الرف في hematoxylin لمدة 10 دقائق، ثم اغسله تحت ماء الصنبور الجاري حتى يصبح ماء الشطف صافياً.
- اغمر الرف في ماء يحتوي على خمس قطرات من حمض الهيدروكلوريك المركز، مع الرج بلطف حتى يظهر لون مائل للاحمرار.
- انقل الرف إلى ماء مشبع بكربونات الليثيوم حتى يتطور لون أزرق مستقر، ثم اشطفه سريعاً بالماء.
- صبغ المقاطع في eosin بتركيز 1% (w/v) لمدة 5 دقائق، ثم اشطفها مرة أخرى بالماء.
- جف الشرائح بنقل الرف عبر جِرار صبغ تحتوي على ماء، وإيثانول بتركيزات 70%، 80%، 96% و10%، مع التحضين لمدة 5 دقائق في كل محلول.
- قم بنقل الشرائح في xylene لمدة 15 دقيقة لإزالة الشوائب (clearing).
- جف ظهر كل شريحة بلطف، وضع وسط التثبيت على غطاء الشريحة، وثبت المقاطع. اترك الشرائح لتجف في درجة حرارة الغرفة (RT) لمدة 24 ساعة قبل التصوير.
- قم بتصوير الأنسجة باستخدام مجهر عالي الدقة بتكبير 20x.
ملاحظة: قم بإجراء صبغ H&E على المقاطع المجاورة أولاً كخطوة لمراقبة الجودة لتقييم مدى ملاءمة العينة للترانسكريبتوميكس المكاني. بعد الاختيار، قم بإجراء صبغ H&E ثانٍ مباشرة على المقطع المخصص للترانسكريبتوميكس المكاني، باتباع إرشادات تحضير الأنسجة الخاصة بالشركة المصنعة لمنصة التعبير الجيني المكاني المدرجة في جدول المواد.
- تقييم سلامة RNA (DV20)
ملاحظة: بالنسبة لبروتوكول التعبير الجيني المكاني، فإن رقم سلامة RNA (RIN) التقليدي غير فعال لأن قمم RNA الريبوسومي 18S و28S تكون غائبة عادة في الأنسجة المثبتة. لذلك، يُستخدم مقياس DV20، الذي يُعرف بأنه النسبة المئوية لشظايا RNA التي تزيد عن 20 نوكليوتيد، كمعيار جودة أكثر دقة من RIN للعينات السريرية المتحللة. بالنسبة لـ Visium v2، توصي شركة 10x Genomics باستخدام كتل FFPE بقيمة DV20 ≥ 30% لضمان تهجين فعال للمجسات وأداء مثالي للمقايسة. يساعد اختيار كتل الأنسجة ذات أعلى قيم DV20 المتاحة في منع فقدان بيانات التسلسل (sequencing dropouts) وزيادة حساسية البقع (spots).- استرجع أنابيب 1.5 mL التي تحتوي على المقاطع بسمك 5 µm التي جُمعت خلال خطوة تقطيع الأنسجة وضعها على الثلج لاستخلاص RNA.
- استخلص RNA الكلي. يتضمن هذا الإجراء الموحد إزالة البارافين من العينة، والهضم بواسطة proteinase K لعكس روابط الفورمالين المتقاطعة، وإزالة DNA الجينومي عبر المعالجة بـ DNase I، والاستخلاص النهائي لـ RNA المنقى في ماء خالٍ من RNase.
- قيم سلامة RNA باستخدام نظام يعتمد على الفصل الكهربائي الشعري مع مقايسة RNA عالية الحساسية. يتوفر ملخص لسير العمل في الملف التكميلي 142,45,46,47,48.
- الفلورة المناعية (IF) الاختيارية للتحقق من نوع الخلايا
- ضع شريحة FFPE في رف صبغ زجاجي وحضنها لمدة 15 دقيقة عند 60 °C.
- انقل الرف إلى جِرار صبغ زجاجية تحتوي على xylene لمدة 15 دقيقة.
- أعد ترطيب المقطع بنقل الرف عبر إيثانول بتركيزات 10%، 96%، 80%، و70% لمدة دقيقتين لكل منها، يتبع ذلك 5 دقائق في الماء و5 دقائق في PBS-Tween (تركيز 1x PBS مضاف إليه 0.1% Tween-20).
تنبيه: يجب تنفيذ جميع الخطوات التي تتضمن xylene والإيثانول داخل خزانة أبخرة كيميائية. - أجرِ استعادة المستضد (antigen retrieval) وفقاً لتوصيات الشركة المصنعة للأجسام المضادة الأولية، مع التأكد من أن محلول الاستعادة، والرقم الهيدروجيني pH، وظروف التسخين تتطابق مع نشرة بيانات الجسم المضاد. ملاحظة: في سير العمل هذا، تتم استعادة المستضد باستخدام 10 mM Tris و1 mM EDTA، pH 9.0، في نظام تسخين بوعاء طهي لمدة 30 دقيقة عند 95 °C، ثم التبريد لمدة 20 دقيقة في درجة حرارة الغرفة (RT).
- اغسل الشريحة مرتين لمدة 10 دقائق في كل مرة باستخدام PBS-Tween.
- ارسم حاجزاً كارهًا للماء حول النسيج باستخدام قلم حاجز كاره للماء، واغلق الارتباط غير النوعي عن طريق وضع 5% BSA في 1x DPBS على مقاطع الأنسجة لمدة 40 دقيقة على الأقل في درجة حرارة الغرفة (RT) داخل غرفة مرطبة.
ملاحظة: يتم تحضير الغرفة المرطبة بوضع ورقة ترشيح في صندوق صبغ شرائح بلاستيكي وترطيبها جيداً بالماء المقطر للحفاظ على بيئة رطبة مستقرة أثناء تحضين الأجسام المضادة. - حضر محلول الأجسام المضادة الأولية في 1x DPBS بالتخفيف الموصى به لكل جسم مضاد.
ملاحظة: في سير العمل هذا، استُخدمت أجسام مضادة أولية ضد Emcn (V.7C7) وCd271 (ME20.4) لتحديد خلايا EC وMSC الفأرية على التوالي، بينما استُخدمت أجسام مضادة ضد CD31 (JC70A) أو PRRX1 (polyclonal) لتحديد نظيراتها البشرية، وفقاً لبروتوكول الشركة المصنعة. - أزل محلول الحجب عن طريق النقر بلطف على حافة الشريحة على ورق ماص لإزالة القطرات المتبقية، ثم ضع خليط الأجسام المضادة الأولية وحضن الشريحة طوال الليل عند 4 °C في غرفة مرطبة.
- اغسل الشريحة مرتين لمدة 5 دقائق في PBS-Tween وحضر محلول الأجسام المضادة الثانوية بالتخفيف الموصى به من الشركة المصنعة، مع التأكد من أن الفلوروفورات متوافقة طيفياً ولا تتداخل.
ملاحظة: في سير العمل هذا، استُخدم جسم مضاد ثانوي مقترن بـ Alexa Fluor بتخفيف 1:200. - ضع خليط الأجسام المضادة الثانوية وحضنه لمدة 30 دقيقة في درجة حرارة الغرفة (RT)، مع الحماية من الضوء في غرفة مرطبة.
- اغسل الشريحة مرتين لمدة 5 دقائق في PBS-Tween.
- ضع تخفيفاً بنسبة 1:10 من وسط تثبيت يحتوي على DAPI (انظر جدول المواد)، المحضر في محلول PBS-glycerol بنسبة 1:1، وحضن العينة لمدة 5 دقائق.
- ثبت المقطع بغطاء شريحة وأغلق الحواف بطلاء الأظافر لمنع الجفاف.
- عاين النسيج المصبوغ باستخدام منصة تصوير متعددة الأطياف.
الملف التكميلي 1: ملخص لخطوات البروتوكول الخاصة بتقييم سلامة الـ RNA وسير عمل تقنية Visium Spatial Transcriptomics. يوفر هذا الملف التكميلي ملخصاً مفصلاً للخطوات الإجرائية التي تم تنفيذها وفقاً لتعليمات الشركة المصنعة. ويتضمن: (1) مقايسة High Sensitivity RNA ScreenTape المستخدمة لتقييم سلامة الـ RNA (DV200) كما هو موضح في الخطوة 2.3.3 من البروتوكول الرئيسي، و(2) نظرة عامة على سير عمل Visium CytAssist Spatial Gene Expression الذي يشمل المعالجة المسبقة للأنسجة، وتحضير المكتبة، والتسلسل (الخطوات 3.1-3.3 من البروتوكول الرئيسي).يرجى النقر هنا لتحميل هذا الملف.
3. علم النسخ المكاني
ملاحظة: قم بتنفيذ سير عمل الترانسكريبتوميات المكانية باستخدام المنصة والكواشف المدرجة في جدول المواد، مع اتباع أدلة المستخدم المقابلة42,45,46. يلخص الملف التكميلي 1 الخطوات الرئيسية للمعالجة المسبقة للأنسجة، وإعداد المكتبة، والتسلسل.
- ضبط جودة بيانات النسخ المكاني (Spatial transcriptomics)
- إجراء عملية فك تعدد الإرسال (Demultiplex) لبيانات النسخ المكاني باستخدام خط المعالجة القياسي لمجموعات بيانات Visium (راجع جدول المواد).
- مطابقة القراءات مع المرجع الجيني المناسب من Ensembl 105.
ملاحظة: تم استخدام GRCh38 للعينات البشرية و mm10 لعينات الفئران. - إنتاج مصفوفات الميزات والباركود المفلترة باستخدام خط المعالجة نفسه واستيرادها إلى بيئة تحليل الخلية الواحدة/التحليل المكاني اللاحقة (راجع جدول المواد).
- فحص صور H&E في واجهة التصور التي يوفرها خط معالجة النسخ المكاني (راجع جدول المواد)، وإزالة البقع التي تتداخل مع منطقة العظم القشري أو أنسجة العظام يدوياً، وذلك حسب مجموعة البيانات.
- تطبيع مجموعات البيانات باستخدام طريقة تحويل تثبيت التباين الشائعة في سير عمل تحليل الخلية الواحدة (راجع جدول المواد).
النتائج
لتقييم قابلية تطبيق تدفق العمل القائم على EDTA عبر الأنواع وسياقات الأمراض، تم تطبيق البروتوكول على أربع عينات من نقي العظام: عظمتين فخديتين للفأر وعينتين عظميتين بشريتين تمثلان حالتي صحة وورم نخاعي متعدد (MM) (الجدول 1 والشكل 1).
| معرّف العينة | النوع | الجنس | العمر | المرض |
| YFPcγ1 | فأر | أنثى | 210 يومًا | سليم |
| mMM | فأر | ذكر | 314 يومًا | MM |
| hHBM | إنسان | ذكر | 76 سنة | سليم |
| hMM | إنسان | أنثى | 50 سنة | MM |
الجدول 1: عينات عظام فئرانية وبشرية شملتها الدراسة. يتم توفير نوع الكائن الحي، والجنس، والسن، والحالة الصحية لكل عينة. الاختصارات: hHBM = نقي العظم البشري السليم؛ hMM = ورم نخاعي متعدد بشري؛ mMM = ورم نخاعي متعدد فئراني؛ MM = ورم نخاعي متعدد؛ YFPcγ1 = فأر ضابط سليم.
تم وصف العينات المستخدمة في هذه الدراسة وتحديدها مسبقًا، وتم الإبلاغ عنها في منشورات سابقة من فريق البحث، وبشكل خاص في أعمال Muiños-Lopez وآخرون وCenzano وآخرون، باستثناء عينة الفأر MM. بالنسبة للعينات التي تم الإبلاغ عنها مسبقًا، تمت الإشارة إلى بيانات النسخ المكاني ونتائجها في تلك الدراسات8,10. وبالتالي، يتم استخدام المواد الواردة هنا لتقييم ملاءمة البروتوكول التقنية للنسخ المكاني، بدلاً من تقديم نتائج بيولوجية جديدة.
تم الحصول على عينات عظام الفخذ من الفئران من نموذج الفأر المعدل وراثيًا لسرطان نخاع العظم (BIcγ1) الموجود في مركز التصوير البيولوجي (BIC)، والذي يُعيد إنتاج الخصائص السريرية والمناعية لمرضى سرطان نخاع العظم، وكذلك من الفأر الضابط السليم المقابل (YFPcγ1)8,49. تم جمع فخذ واحد من كل حيوان، وتنظيفه، ومعالجته وفقًا للبروتوكول الموحّد (الشكل 2A). استُخدم فخذ الفخذ تحديدًا في هذه التحاليل لأنه يوفر نخاعًا وفيرًا، وجودة ممتازة للبيئة الموضعية، وسهولة في المعالجة القابلة للتكرار، مما يجعله مناسبًا جدًا لمنصة التحليل النسيجي المكاني القائم على التسلسل الجيني8,10. تم التأكد من نجاح إزالة التكلس من فخذ الفأر الضابط فحصًا بصريًا من خلال الزيادة الملحوظة في مرونة النسيج أثناء التلاعب اليدوي باستخدام الملاقط (الشكل 2B). بعد ذلك، تم تضمين هذا القطعة العظمية بكفاءة في البارافين باستخدام قالب متخصص متوافق مع التحليل النسيجي المكاني للحفاظ على سلامة الحمض الريبي النووي (RNA) وبنيان النسيج تمهيدًا للتحليل الجزيئي اللاحق (الشكل 2C).
تم أيضًا تحليل عينتين بشريتين من نخاع العظم ذوات تاريخ معالجة مختلف8,10. تم الحصول على عينة بشرية طازجة من نخاع العظم السليم من الناحية الدموية من النفايات الجراحية أثناء استبدال مفصل الورك في مستشفى جامعة نافارا (الشكل 2D–F). ولإظهار الفائدة الانتقالية للبروتوكول، تمت معالجة هذه العينة كما تُعالج العينات الفأرية. وتم التأكد بصريًا من نجاح إزالة التكلس بالـEDTA في عينة العظم البشري من خلال تليين الأنسجة تمامًا، كما يتضح من اختراق الإبرة بسهولة (الشكل 2E). كما تم تضمين قطعة العظم البشري المُزالة تكلسها بنجاح في الشمع البارافيني باستخدام قالب معدني قياسي للمعالجة اللاحقة (الشكل 2F). أما العينة البشرية الثانية فقد تضمنت عينات أرشيفية من خزعات نخاع العظم المثبتة في الفورمالين والمدمجة في الشمع (FFPE) والمأخوذة من عرف الحرقفة لمرضى الورم النقي المتعدد في قسم علم الأمراض في عيادة جامعة نافارا (CUN). ومن الجدير بالذكر أن هذه العينة الأرشيفية من مرضى الورم النقي المتعدد كانت قد خضعت مسبقًا لإزالة التكلس باستخدام بروتوكول سريري قياسي يعتمد على الأحماض القوية36. توفر هذه العينة مقارنة نوعية مع العينات المُعالجة بـEDTA؛ ومع ذلك، فإن الاختلافات في مصدر النسيج وتاريخ التثبيت والتخزين وطريقة إزالة التكلس تعني أن الاختلافات الملحوظة لا يمكن نسبتها فقط إلى عامل إزالة التكلس.
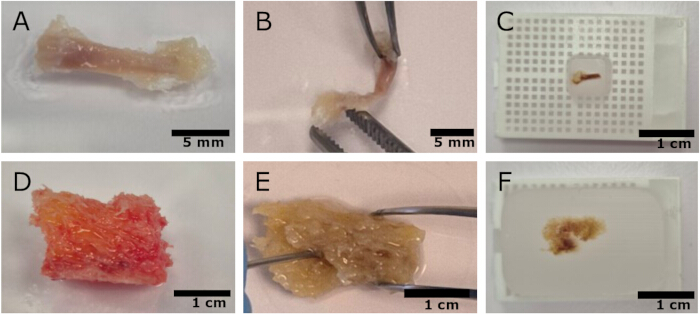
الشكل 2: عينات عظام الفئران والإنسان أثناء التحضير القائم على EDTA. (A) عظام الفخذ السليمة للفئران الضابطة قبل إزالة التكلس. (B) عظمة فخذ الفأر الضابطة بعد إزالة التكلس، وتُظهر مرونة متزايدة. (C) قطع عظام الفأر الضابطة المطمورة في البارافين. (D) قطع عظام بشرية سليمة من جراحة الورك قبل إزالة التكلس. (E) نفس القطعة بعد إزالة التكلس باستخدام EDTA، وتُظهر اختراق الإبرة. (F) عظمة بشرية سليمة خضعت لإزالة التكلس باستخدام EDTA، ومطمورة في البارافين. شرائط المقياس: (A, B) 5 مم؛ (C–F) 1 سم. الاختصار: EDTA = حمض الإيثيلين دي أمين تيترا خلّي. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
لتحليل بنية الأنسجة العامة، تم إجراء صبغة الهيماتوكسيلين والإيوزين (H&E) (الشكل 3). قد تعكس الحفظ الأفضل للتركيب النسيجي في مقاطع الفئران الاختلافات في التعامل مع العينات ومعالجتها، وليس بالضرورة صفات فسيولوجية متأصلة في النوع. جُمعت عظام الفخذ للفئران خصيصًا من أجل التحليل النسيجي للتعبير الجيني المكاني وتم معالجتها فورًا كعظام كاملة، مما ساهم في الحفاظ على بنيتها (الشكل 3A، B). على النقيض من ذلك، تأتي العينات البشرية إما من مواد متبقية تم الحصول عليها أثناء جراحة استبدال الورك (الشكل 3C) أو من خزعات تشخيصية لسرطان نخاع العظم (MM) (الشكل 3D)، وكلا النوعين قد يشوبهما تباين في جودة الأنسجة قبل التحليل. ونتيجة لذلك، فإن الاختلافات النسيجية بين العينة البشرية المزالة منها المعادن باستخدام EDTA والخزعة المزالة منها المعادن باستخدام حمض ما، تكون طفيفة، لأن كلا العينتين البشريتين تُظهران بالفعل قيودًا هيكلية أساسية ناتجة ليس فقط عن عملية إزالة المعادن، بل أيضًا عن المعالجة العامة للأنسجة (الشكل 3C، D). وعليه، يتطلب تقييم شامل لجودة العينة من أجل التحليل النسيجي للتعبير الجيني المكاني تقييم عدة معايير مختلفة. أولاً، يجب مراقبة سلامة النسيج بعناية، لأن الحفاظ على البنية يمكن أن يختلف بشكل كبير باختلاف نوع العينة المحددة، وليس فقط حسب نوع الحمض المستخدم لإزالة المعادن. ثانيًا، ينبغي أيضًا تقييم جودة الحمض النووي الريبي (RNA)، لأن ظروف إزالة المعادن يمكن أن تؤثر عليه20,35,36.
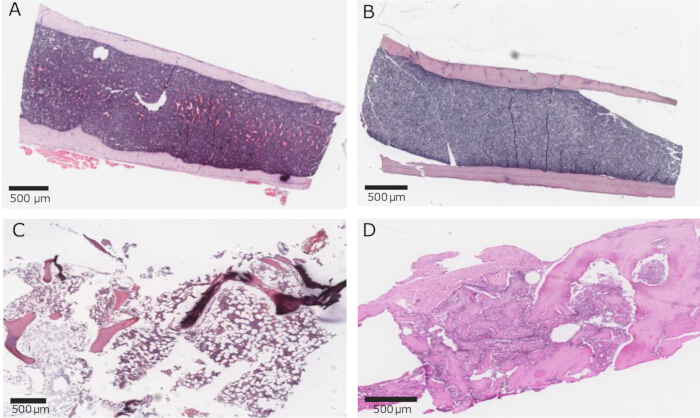
الشكل 3: مقاطع مصبوغة بهيماتوكسيلين والإيوزين (H&E) تُستخدم لتقييم جودة الأنسجة. تمثل المقاطع المتسلسلة من الأنسجة المثبتة بالفورمالين والمدمجة في البارافين (FFPE) ما يلي: (أ) فأر تحكم سليم10، (ب) فأر مصاب بورم نخاعي متعدد (MM)، (ج) عظمة بشرية سليمة8,10، و(د) خزعة ورم نخاعي متعدد بشرية8. شرائط المقياس = 500 µm. الاختصارات: FFPE = الأنسجة المثبتة بالفورمالين والمدمجة في البارافين؛ H&E = الهيماتوكسيلين والإيوزين؛ MM = الورم النخاعي المتعدد. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
لإكمال التحليل النسيجي، تم تقييم جودة الحمض الريبي النووي (RNA). في حين أظهرت صبغة الهيماتوكسيلين واليوزين (H&E) فروقًا غير واضحة، فإن سلامة الحمض الريبي النووي أظهرت تمييزًا واضحًا بين تأثير طريقتي إزالة التكلس (الجدول 2). تجاوزت قيم DV200 من كل من العينات الفأرية وعينة العظم البشري السليمة العتبة الموصى بها لاختبارات Visium FFPE، مما يشير إلى توزيع مناسب لطول جزيئات الحمض الريبي النووي يكفي لارتباط المجسات وبناء المكتبة. تُظهر عينة الفأر السليمة المُعبرة عن البروتين الفلوري الأصفر (YFP) قيمة DV200 تبلغ 82.55%، بينما تصل عينة العظم البشري السليم (hHBM) إلى 58%، وكلتاهما أعلى بكثير من العتبة المقبولة البالغة 30% المُعرّفة من قبل 10x Genomics. تُظهر عينة فأر الورم النخاعي (mMM) قيمة DV200 تبلغ 31.3%، وهي قريبة من الحد الأدنى للقبول، وقد تعكس هذه القيمة التخزين المديد للكتلة الشمعية عند 4 °C قبل التقطيع، إلى جانب عوامل أخرى خاصة بالعينة. على النقيض، تُظهر عينة خزعة الورم النخاعي البشري التي خضعت لإزالة التكلس بالحمض (hMM) قيمة DV200 لا تتجاوز 8%، وهي مرتبطة بانخفاض ملحوظ في سلامة الحمض الريبي النووي، حتى وإن كان التدهور النسيجي أقل وضوحًا. باختصار، من المهم إجراء تقييمات هيكلية وجزيئية معًا لتقييم مدى ملاءمة العينة للتحليل المكاني اللاحق.
| تحديد العينة | DV200 (%)1 |
| YFPcγ1 | 82.55 |
| م.م.م | 31.3 |
| hHBM | 58 |
| hMM2 | 8 |
| 1DV200: نسبة أجزاء RNA الكلية > 200 نوكليوتيد. | |
| 2تم إزالة التمعدن من هذا العينة باستخدام بروتوكول سريري قياسي يتضمن أحماضًا قوية. | |
الجدول 2: جودة الحمض النووي الريبي لعينات الدراسة. يُشير DV200 إلى النسبة المئوية لقطع الحمض النووي الريبي الأطول من 200 نوكليوتيد؛ واعتُبرت القيم التي تبلغ 30% على الأقل مناسبة للتحليلات النسخية المكانية اللاحقة. الاختصارات: hHBM = نقي العظم البشري السليم؛ hMM = المايلوما المتعددة البشرية؛ mMM = المايلوما المتعددة الفئرية.
يمكن أيضًا إجراء تقييمات إضافية للجودة. وللتحقق بشكل أكبر من سلامة الأنسجة وتأكيد الحفاظ على الحجيرات الخلوية المحددة بعد إزالة التكلس بواسطة EDTA، أُجري تلوين مناعي اختياري على مقاطع FFPE مجاورة من أنسجة الفأر والإنسان. استُخدمت الأجسام المضادة ضد Endomucin (Emcn) وCd271 لتصور الخلايا البطانية (EC) والخلايا الوسيطة (MSC) على التوالي في عينة الفأر المصابة بورم النخاع (MM) (الشكل 4A). أظهر هذا التلوين أن الأنسجة المعالجة بـ EDTA أظهرت هياكل وعائية محددة جيدًا مع تلوين مستمر لـ Emcn وشبكات نسيجية داعمة محفوظة، مما يدل على أن العلامات المختبرة بقيت قابلة للكشف بعد المعالجة. علاوةً على ذلك، وفر التصوير عالي الدقة باستخدام نظام تصوير متعدد الأطياف آلي دليلًا إضافيًا على بقاء المستضدات المختبرة قابلة للكشف من أجل التحقق من نوع الخلية، مما يوفر طبقة إضافية من ضبط الجودة قبل التحليل النسخي المكاني. علاوةً على ذلك، لوحظت هذه النتائج أيضًا في عينات بشرية سليمة لكبار السن، حيث تم الكشف عن التعبير في الخلايا البطانية باستخدام الأجسام المضادة ضد CD31 وفي الخلايا الوسيطة باستخدام الأجسام المضادة ضد PRRX1 (Paired Related Homeobox 1)، مما يدل على أن علامات البيئة المختبرة بقيت قابلة للتعرف عليها بعد إزالة التكلس بواسطة EDTA (الشكل 4B). على العكس، لم تُمكن إعادة إنتاج هذه النتائج في خزعات بشرية مصابة بورم النخاع خضعت لبروتوكولات مختلفة لإزالة التكلس القائمة على الأحماض. وكما ذُكر سابقًا، كانت سلامة الـ RNA منخفضة في هذه العينات، مما يحد من التحليل النسخي اللاحق. ونظرًا لطبيعة هذه العينات البشرية المهترئة، كانت فائدتها اللاحقة محدودة بالتحليل النسخي القاعدي8 وتقييم الخلايا البلازمية الخبيثة (PC) باستخدام التلوين المناعي النسيجي (IHC) (الشكل 4C).
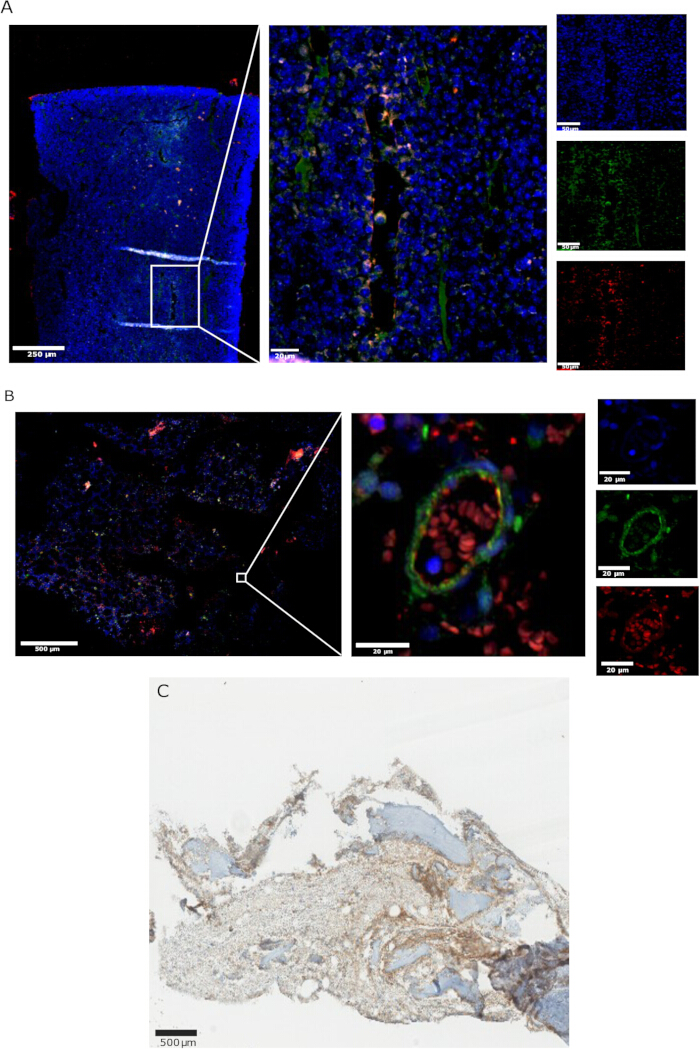
الشكل 4: تلوين مناعي مضيء وتلوين مناعي نسيجي اختياريان للتحقق من نوع الخلية. (A) نسيج ورم نقي عظمي للفأر يُظهر نوى مُوسومة بـ DAPI (أزرق)، وخلايا جذعية متعددة القدرات سلبية لـ CD271 (أخضر)، وخلايا بطانية موجبة لـ EMCN (أحمر). (Bعظام بشرية سليمة تُظهر نوى موسومة بـ DAPI (أزرق)، وخلايا جذعية متعددة القدرات إيجابية لـ PRRX1 (خضراء)، وخلايا بطانية إيجابية لـ CD31 (حمراء)10. (جخزعة بشرية من المايلوما المتعددة تُظهر خلايا بلازما خبيثة موجبة لـ CD1388. شواخص القياس: (A) 250 µm (نظرة عامة)، 20 µm (توسيع مدمج)، و 50 µm (صور قناة واحدة)؛ (B) 500 µm (نظرة عامة) و 20 µm (تضخيمات قنوات منفصلة ومدمجة)؛ (ج) 500 µmالاختصارات: DAPI = 4′,6-داي أميدينو-2-فينيليندول؛ EC = الخلية البطانية؛ MM = ورم نخاعي متعدد؛ MSC = الخلية السدى المكونة للنسيج؛ PC = الخلية البلازمية يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
معًا، تدعم نتائج التركيب النسيجي ومؤشر DV200 ملاءمة العينات المُعالجة بـ EDTA للتحليل النسخي المكاني اللاحق. وقد سبق نشر تطبيقات النسخ المكاني لهذه الطريقة التحضيرية8,10.
المناقشة
من خلال دمج عملية إزالة التكلس المحكومة القائمة على EDTA، ومعالجة FFPE القياسية، ونقاط تفتيش صارمة لمراقبة الجودة، يتجاوز هذا البروتوكول العديد من القيود المرتبطة تقليدياً بتحضير أنسجة العظام لتقنية النسخ المكاني (spatial transcriptomics)، وبالأخص تلك المتعلقة بتدهور RNA والتلف المورفولوجي الناجم عن طرق إزالة التكلس القائمة على الأحماض القوية8,10,20,33,36. وتعد إزالة التكلس الخطوة الأكثر أهمية في معالجة العينات المعدنية المخصصة للنسخ المكاني؛ حيث تؤدي إزالة التكلس غير الكافية إلى بقاء العظام صلبة للغاية بحيث يصعب تقطيعها، مما يجعل من المستحيل مادياً الحصول على مقاطع عالية الجودة للنسخ المكاني8,20,23,37,50. وعندما تظل أنسجة العظام صلبة جداً، فإنها تتفتت أو تهتز عند ملامستها لشفرة الميكروتوم، مما يؤدي إلى تمزق المقاطع أو ظهور ثقوب لا تمثل البنية الأصلية لنخاع العظم (BM) بدقة. ومن المهم الإشارة إلى أن نجاح عملية إزالة التكلس لا يمكن تأكيده بشكل كامل إلا في مرحلة التقطيع المجهري (microtomy)؛ فحتى العينات التي تبدو لينة ظاهرياً قد تظل تحتوي على معادن متبقية لا تظهر إلا عند محاولة قطع مقاطع رقيقة من FFPE. لهذا السبب، يعد الرصد الدقيق لتقدم عملية إزالة التكلس أمراً ضرورياً لضمان الحصول على نتائج قابلة للتكرار.
يستخدم سير العمل 0.25 M EDTA عند pH 6.95 لمدة 10 أيام مع تقليب مستمر واستبدال للمحلول في اليوم الخامس8,10. أثناء تطوير البروتوكول، تم تقييم EDTA بمفرده، وEDTA مدعماً بـ polyvinylpyrrolidone، وحمض الفورميك بتركيز 10%، إلى جانب فترات إزالة تكلس مختلفة وجداول زمنية لاستبدال المحلول؛ ولم تُعرض البيانات المقارنة هنا. وغالباً ما أدت الفترات التي تقل عن 10 أيام إلى تكسر الأنسجة أثناء تقطيع عينات الفئران، بينما أظهرت العينات البشرية سلوكاً يعتمد على طبيعة العينة. ولذلك، تُستخدم مدة 10 أيام لعظام الفخذ لدى الفئران، بينما قد تتطلب العينات البشرية فترة إزالة تكلس أطول وفقاً للكثافة والمحتوى التربيقي. يجب استخدام نقاط تفتيش لمراقبة الجودة الفيزيائية قبل الطمر في البارافين. وإذا تبين عدم كفاية إزالة التكلس أثناء عملية التقطيع المجهري، يتم استخدام إجراء إعادة المعالجة فقط كخطوة إنقاذ أخيرة لأن التعرض الإضافي للحرارة والمذيبات وإعادة الترطيب قد يؤثر سلباً على جودة RNA.
يتمثل القيد الأساسي لهذه الطريقة في وقت المعالجة الطويل، وهو ما يتناقض بشكل صارخ مع البروتوكولات السريعة القائمة على الأحماض والمستخدمة عادةً في علم الأمراض السريري20,36. وعلى الرغم من أن أوقات المعالجة الأطول تكون مقبولة عموماً في سياقات البحث، إلا أن الدراسات الحديثة، مثل البروتوكول الذي وصفه Miao et al.، والذي يستخدم محلول Morse (حمض الفورميك 22.5% وسترات الصوديوم 10%) لإزالة التكلس في غضون 24 h، تسلط الضوء على الاهتمام المتزايد بتسريع تحضير العظام للمقاييس المكانية20. ومع ذلك، فإن الطرق القائمة على الأحماض تحمل تاريخياً مخاطر أعلى بكثير لتحلل الـ RNA، مما يقلل من قيم DV200 ويحد في النهاية من توافقها مع النسخ المكانية (spatial transcriptomics)1,8,35,36. ويمنح هذا النهج القائم على EDTA الأولوية للحفاظ على الـ RNA على حساب السرعة، مما يضمن التوافق مع المنصات المكانية القائمة على التسلسل مثل Visium.
تتمثل إحدى القيود المحتملة للنسخ المكاني (spatial transcriptomics) لنخاع العظم في الوفرة العالية لنسخ الغلوبولين المناعي المشتقة من الخلايا البلازمية (PC)، مما قد يقلل من القدرة على الكشف عن الجينات ذات الوفرة المنخفضة. وكما هو الحال مع استراتيجيات مراقبة الجودة والترشيح المطبقة في دراسة سابقة للمجموعة البحثية، بما في ذلك إزالة البقع منخفضة الجودة (<200 UMIs و <150 جينًا مكتشفًا)، وترشيح أنواع الخلايا ذات المساهمة المنخفضة (<20% لكل بقعة) أثناء تحليلات فك الالتفاف (deconvolution analyses)، واختيار الجينات الواسمة المكتشفة في مجموعات بيانات النسخ المكاني، يمكن أيضًا ترشيح نسخ الغلوبولين المناعي حاسوبيًا أثناء التحليل اللاحق لتقليل تأثيرها عند الاقتضاء8. وقد تؤدي مناهج النسخ المكاني المستهدفة إلى تحسين الكشف عن النسخ ذات الوفرة المنخفضة بشكل أكبر في تطبيقات محددة.
تتعدد التطبيقات المحتملة لهذه الطريقة بشكل كبير. فقد كشف التكامل الحديث بين البيانات المكانية وبيانات الخلية الواحدة عن وجود محادق عظمية بشرية متخصصة وتدرجات إشارية معقدة تشع من العظم التربيقي3,26. علاوة على ذلك، أظهر علم النسخ المكاني أن الشيخوخة تعيد تشكيل البيئة المجهرية لنخاع العظم (BM) من خلال تغيير التنظيم المكاني والتواصل بين الخلايا البطانية (EC)، مما يؤدي إلى ضعف الدعم العظمي وظهور شبكات إشارية التهابية داخل المحدقة المتقدمة في السن10. كما حدد التنميط متعدد الأوميك أحياء بيئية مجهرية متميزة، مثل المناطق الشريانية-بطانة العظم التي تدعم تكوين النقاوة المبكر، والمناطق المحيطة بالخلايا الدهنية الغنية بالخلايا الجذعية والسلفية المكونة للدم3. وفي سياق الورم النخاعي المتعدد (MM)، يتيح هذا البروتوكول دمج أطر النسخ المكانية والخاصة بالخلية الواحدة لتوصيف تكوين نخاع العظم الفأري المصاب والتفاعلات بين الخلايا. وقد كشفت أعمال سابقة عن توزيعات متميزة مكانياً للخلايا البلازمية (PC) الخبيثة، وحددت برامج مناعية والتهابية، مثل عملية NETosis وإشارات IL-17، والتي كانت مرتبطة عكسياً بالمناطق الغنية بالأورام. بالإضافة إلى ذلك، ارتبطت الزيادة في كثافة الخلايا البلازمية الخبيثة بتحول في حالات الخلايا التائية (T-cell) من الحالة المؤثرة إلى الحالة المجهدة. وتم التحقق من هذه النتائج أيضاً في عينات نخاع العظم البشرية المثبتة بالفورمالين والمطمورة في البارافين (FFPE)، مما يثبت أهميتها الترجمية عبر مختلف أحمال المرض8. وفي النهاية، يوفر سير عمل التحضير هذا الأساس التقني لاستكشاف التفاعلات الخلوية المعقدة داخل البنية المعدنية لنخاع العظم.
يمكن لمنصات التعبير الجيني المكاني عالية الدقة أن توفر توصيفاً كاملاً للترانسكريبتوم بدقة تقارب دقة الخلية الواحدة38,51,52. وقد تعمل هذه المنهجيات على توسيع نطاق استخدام سير عمل التحضير لإجراء تحليلات أكثر دقة لنخاع العظم (BM) والسرطانات الدموية المنظمة مكانياً. وبناءً على ذلك، يوفر سير العمل هذا أساساً تقنياً للدراسات المستقبلية حول تكوين الدم الفسيولوجي والخبيث.
الإفصاحات
يصرح المؤلفون بعدم وجود تضارب في المصالح. وقد تم منح ترخيص لبراءة اختراع تتعلق بالمعرفة الفنية والاستخدام التجريبي لنماذج الفئران MIcγ1 المصابة بـ MM لشركة MIMO Biosciences (طلب رقم PCT/EP2023/071025).
شكر وتقدير
تم دعم هذا العمل من قبل Instituto de Salud Carlos III وبتمويل مشترك من ERDF A way of making Europe (PI22/00983)؛ وCIBERONC (CB16/12/00489)، وRICORS TERAV (RD21/0017/0009) وRICORS TERAV Plus (RD24/0014/0010)؛ وAGATA 0011-1411-2020- 000010/0011-1411-2020-000011؛ وDepartamento de Salud Gobierno de Navarra (GN2024/04)؛ وCancer Research UK [C355/A26819]؛ وFC AECC وAIRC ضمن برنامج Accelerator Award؛ وThe International Myeloma Foundation (Brian van Novis) وThe Paula and Rodger Riney Foundation لـ FP. كما حصل IAC على دعم من منحة ماري كوري (H2020- MSCA-IF-837491) من المفوضية الأوروبية، ومنحة AECC Talent (INVES258003CALV)، وDepartamento de Salud, Gobierno de Navarra (GN2023/03). وحصل MC على دعم من زمالة FPU (FPU22/03283) من Ministerio de Ciencia, Innovación y Universidades. نود أن نشكر موظفي مختبر الجينوميات المتقدمة ومرفق الحيوانات في CIMA Universidad de Navarra على مساعدتهم الفنية والفكرية القيمة. كما نعرب عن تقديرنا لأقسام الباثولوجيا في Clínica Universidad de Navarra (CUN) وHospital Universitario de Navarra لتوفير عينات BM ولتعاونهم المتميز. وتوجه شكر خاص إلى José Ángel Martínez-Climent وMarta Larrayoz على نماذج الفئران المصابة بـ MM. والشكر موجه إلى Patxi San Martín-Uriz وTania López وEduardo Larequi لدعمهم الممتاز في تحسين التقنية، وتطوير البروتوكولات، وحل مشكلات معالجة عينات BM للفئران والبشر في التحليل النسخي المكاني. كما نشكر Beñat Ariceta وAsier Ullate على جميع أعمالهم الحسابية في التحليل النسخي المكاني. وأخيرًا، نعرب عن امتناننا العميق للمرضى والمتبرعين الأصحاء الذين شاركوا بسخاء في هذه الدراسة.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| أنابيب سعة 1.5 mL | Eppendorf | 15625367 | |
| وعاء معقم سعة 100 mL | deltalab | 723-510 | |
| 4200 TapeStation | Agilent | G2991A | نظام يعتمد على الفصل الكهربائي الشعيري – لتقييم سلامة RNA |
| وعاء معقم سعة 50 mL | IberoMed | REOR001 | |
| أنبوب سعة 50 mL | FALCON | 352070 | |
| Advanced PAP Pen | Ted Pella 22309 | Z377821-1EA | قلم حاجز كاره للماء |
| جسم مضاد Anti-PRRX1 مُنتج في أرنب | Sigma-Aldrich | HPA051084 | |
| BSA (ألبومين المصل البقري) | Sigma-Aldrich | A9418-50G | |
| كاسيتات | KartellLABWARE | 2921 | |
| جسم مضاد أحادي النسيلة CD271 (مستقبل NGF) (ME20.4) | Invitrogen | 14-9400-82 | |
| CD31، خلية بطانية (مركز) مستنسخة JC70A | Aligent Dako | M0823 | |
| شرائح غطاء | Fisher Scientific | 12-544-EP | 50 mm x 24 mm |
| DAPI (وسط تثبيت VECTASHIELD مانع للتلاشي مع DAPI) | Vector Laboratories | H-1200-10 | |
| محلول إزالة البارافين | Qiagen | 19093 | |
| DPBS | Thermo Scientific | AAJ67802AP | محلول ملحي منظم بالفوسفات (DPBS, 1×) من Thermo Scientific Chemicals، صيغة Dulbecco، بدون كالسيوم، بدون مغنيسيوم |
| وسط تثبيت DPX للأنسجة | Sigma-Aldrich | 06522-500ML | |
| EDTA | Thermo Scientific | 15748687 | حمض إيثيلين ثنائي أمين رباعي الخليك، (EDTA)، محلول بتركيز 0.5 M، درجة البيولوجيا الجزيئية، فائق النقاء |
| محطة طمر | Leica Biosystems | 14 0388 81101 | Leica EG1150H |
| جسم مضاد Emcn (V.7C7) | Santa Cruz Biotechnology | sc-65495 | |
| الجينوم المرجعي Ensembl (GRCh38 / mm10، الإصدار 105) | EMBL-EBI | N/A | الجينوم المرجعي المستخدم لمحاذاة القراءات. |
| إيوسين | Millipore Sigma | HT110116 | |
| إيثانول | Millipore Sigma | E7023-500ML | مقصات جراحية |
| حمام مائي للأنسجة Falc Instruments B-I | Falc | 610.1030.00 | |
| فورمالين 4% | PanReac AppliChem | 2524311315 | فورمالدهيد 3.7%–4.0% w/v منظم عند pH = 7 ومثبت بالميثانول (CE-IVD) للتشخيص السريري |
| حامل صبغ للشرائح الزجاجية | WHEATON | Z710970-3EA | |
| جرار صبغ زجاجية | BRAND | BR472200-10EA | Mastercycler X50 |
| جليسرول | Sigma-Aldrich | C3H803 | |
| جسم مضاد ثانوي Goat anti-Mouse IgG (H+L) ممتز متبادل، Alexa Fluo 568 | Invitrogen | A11004 | |
| جسم مضاد ثانوي Goat anti-Mouse IgG (H+L) ممتز متبادل بدرجة عالية، Alexa Fluo Plus 488 | Invitrogen | A32723 | |
| جسم مضاد ثانوي Goat anti-Rabbit IgG (H+L) ممتز متبادل بدرجة عالية، Alexa Fluor 488 | Invitrogen | A11034 | |
| هيماتوكسيلين | Millipore Sigma | MHS16 | |
| High Sensitivity RNA ScreenTape | Agilent | 5067-5579 | تقييم سلامة RNA |
| High Sensitivity RNA ScreenTape Ladder | Agilent | 5067-5581 | تقييم سلامة RNA |
| High Sensitivity RNA ScreenTape Sample Buffer | Agilent | 5067-5580 | تقييم سلامة RNA |
| مجهر عالي الدقة | Leica Biosystems | N/A | ماسح Aperio CS2 |
| حمض الهيدروكلوريك (0.1 N HCl) | Fisher Chemical | SA54-1 | |
| منصة Illumina NextSeq 2000 | Illumina | 20038897 | |
| جسم مضاد ثانوي Invitroge Goat anti-Rat IgG (H+L) ممتز متبادل، Alexa Fluo 568 | Invitrogen | A11077 | |
| مقصات قزحية - ToughCut | F.S.T | 14058-11 | |
| Isovet | BRAUN | BR3009 | إيزوفلورين |
| كربونات الليثيوم | Merck | 554-13-2 | |
| Loupe Browser (v6.0.0) | 10x Genomics | N/A | برنامج مستخدم لتصور صور HE وتنظيم بقع Visium؛ يفتح ملفات .cloupe الناتجة عن خط تحليل البيانات. |
| قوالب طمر معدنية | Bio-Optica | 07-BM24256 | |
| شرائح مجهرية | avantor | 631-0108 | شرائح مجهرية Superfrost Plus |
| شفرات الميكروتوم | FEATHER | FEAT207500006_U | |
| ميكروتوم HM 340E | Epredia | N/A | طراز HM 340E |
| إبرة | BD | 301156 | إبرة BD Microlanc 3 بسعة 21 G وطول 1 IN (25 MM) |
| Nikon Optiphot-2 | Nikon | 71052 | مجهر ضوئي بمجال مضيء |
| بارافين | PanReac AppliChem | 256993 | بارافين بـ M.P. 55–58°C ملدن + حبيبات DMSO (CE-IVD) للتشخيص السريري |
| طبق بتري | Corning | CLS430167-100EA | |
| قوالب طمر بلاستيكية | Bio-Optica | 07-MP7070 | |
| ملقط Potts-Smith | F.S.T | 11012-18 | ملقط |
| مقياس فلورية Qubit 3.0 | Invotrogen | Q33216 | |
| أنابيب مقايسة Qubit | Invotrogen | Q32856 | |
| طقم مقايسة Qubit RNA HS | Invotrogen | Q32855 | |
| أنبوب طرد مركزي دقيق سعة 1.5 mL خالٍ من RNAse | Thermo Scientific | AM12400 | |
| ماء خالٍ من RNase | Merk | W4502 | |
| RNaseZap Rnase | Invotrogen | AM9780 | محلول تطهير |
| طقم RNeasy FFPE (50) | Qiagen | 73504 | استخلاص RNA الكلي |
| SCTransform (v0.3.5) | Satija Lab | N/A | طريقة تسوية تثبيت التباين المطبقة في Seurat. |
| Seurat (v4.3.0.1) | Satija Lab | N/A | حزمة R مستخدمة لتحليل الترانسكريبتوميكس وحيد الخلية والمكاني. |
| Space Ranger (v2.0.1) | 10x Genomics | N/A | برنامج مستخدم لإلغاء تعدد الإرسال، والمحاذاة، وتوليد مصفوفات السمات-الباركود لمجموعات بيانات Visium. |
| مشرط Stlime | Schreiber GmbH | 51-11-030 | |
| STutility (v1.1.1) | Bergen Lab | N/A | حزمة R مستخدمة لتصور وتكامل الترانسكريبتوميكس المكاني. |
| شفرة مشرط جراحي رقم 23 | Swann-Morton | 210 | شفرات مشرط جراحي |
| دورة حرارية | Eppendorf | 6313000018 | |
| Tween-200 | Sigma-Aldrich | P2287-500ML | |
| Vectra Polaris | PerkinElmer | CLS143455 | منصة تصوير متعدد الأطياف لتصور IF |
| طقم ملحقات Visium 10X Genomics | 10x Genomics | PN-1000194 | |
| Visium CytAssist | 10x Genomics | PN-1000441 | |
| طقم مجسات الترانسكريبتوم البشري Visium الصغير 10X Genomics | 10x Genomics | PN-1000363 | |
| طقم مجسات الترانسكريبتوم الفأري Visium الصغير 10X Genomics | 10x Genomics | PN-1000365 | |
| طقم شرائح التعبير الجيني المكاني Visium لـ 4 تفاعلات 10X Genomics | 10x Genomics | PN-1000188 | |
| زايلين | Panreac | 214736 | زايلين، خليط من المتصاوغات للتحليل، ACS, ISO |
المراجع
- Cooper RA, et al. Spatial transcriptomic approaches for characterising the bone marrow landscape: pitfalls and potential. Leukemia. 2025;39(2):291-295.
- Mercier FE, Ragu C, Scadden DT. The bone marrow at the crossroads of blood and immunity. Nat Rev Immunol. 2012;12(1):49-60.
- Bandyopadhyay S, et al. Mapping the cellular biogeography of human bone marrow niches using single-cell transcriptomics and proteomic imaging. Cell. 2024;187(12):3120-3140.e29.
- Tikhonova AN, et al. The bone marrow microenvironment at single-cell resolution. Nature. 2019;569(7755):222-228.
- Baccin C, et al. Combined single-cell and spatial transcriptomics reveal the molecular, cellular and spatial bone marrow niche organization. Nat Cell Biol. 2020;22(1):38-48.
- Kunisaki Y, et al. Arteriolar niches maintain haematopoietic stem cell quiescence. Nature. 2013;502(7473):637-643.
- Kusumbe AP, Ramasamy SK, Adams RH. Coupling of angiogenesis and osteogenesis by a specific vessel subtype in bone. Nature. 2014;507(7492):323-328.
- Muiños-Lopez E, et al. Characterization of the bone marrow architecture of multiple myeloma using spatial transcriptomics. Commun Biol. 2025;8(1):1620.
- Gui G, et al. Single-cell spatial transcriptomics reveals immunotherapy-driven bone marrow niche remodeling in AML. Sci Adv. 2025;11(28):eadw4871.
- Cenzano I, et al. Single-cell profiling reveals RAB13+ endothelial cells and profibrotic mesenchymal cells in aged human bone marrow. Aging Cell. 2026;25(4):e70475.
- de Jong MME, et al. The multiple myeloma microenvironment is defined by an inflammatory stromal cell landscape. Nat Immunol. 2021;22(6):769-780.
- de Jong MME, et al. An IL-1β-driven neutrophil–stromal cell axis fosters a BAFF-rich protumor microenvironment in individuals with multiple myeloma. Nat Immunol. 2024;25(5):820-833.
- Cenzano I, et al. Stromal and endothelial transcriptional changes during progression from MGUS to myeloma and after treatment response. Nat Commun. 2026;17:74389.
- Ye J, et al. Deconvolution of the hematopoietic stem cell microenvironment reveals a high degree of specialization and conservation. iScience. 2022;25(5):104225.
- Chen L, et al. An inflammatory T-cell-stromal axis contributes to hematopoietic stem/progenitor cell failure and clonal evolution in human myelodysplastic syndrome. Nat Commun. 2025;16(1):10041.
- Prummel KD, et al. Inflammatory stromal and T cells mediate human bone marrow niche remodeling in clonal hematopoiesis and myelodysplasia. Nat Commun. 2025;16(1):10042.
- De Jonghe J, et al. scTrends: A living review of commercial single-cell and spatial 'omic technologies. Cell Genom. 2024;4(12):100723.
- van den Brink SC, et al. Single-cell sequencing reveals dissociation-induced gene expression in tissue subpopulations. Nat Methods. 2017;14(10):935-936.
- Asp M, Bergenstråhle J, Lundeberg J. Spatially resolved transcriptomes—next generation tools for tissue exploration. Bioessays. 2020;42(10):1900221.
- Miao J, et al. A practical protocol of processing mineralized tissue for Visium spatial transcriptomics. Mechanobiol Med. 2025;3(4):100163.
- Baldwin M, et al. A roadmap for delivering a human musculoskeletal cell atlas. Nat Rev Rheumatol. 2023;19(11):738-752.
- Duan H, Cheng T, Cheng H. Spatially resolved transcriptomics: advances and applications. Blood Sci. 2023;5(1):1-12.
- Xiao X, et al. Spatial transcriptomic interrogation of the murine bone marrow signaling landscape. Bone Res. 2023;11(1):59.
- Jain S, Eadon MT. Spatial transcriptomics in health and disease. Nat Rev Nephrol. 2024;20(10):659-671.
- Tilburg J, et al. Spatial transcriptomics of murine bone marrow megakaryocytes at single-cell resolution. Res Pract Thromb Haemost. 2023;7(4):100158.
- Lin W, et al. Mapping the spatial atlas of the human bone tissue integrating spatial and single-cell transcriptomics. Nucleic Acids Res. 2025;53(2):gkae1298.
- Marx V. Method of the Year: spatially resolved transcriptomics. Nat Methods. 2021;18(1):9-14.
- Yue L, et al. A guidebook of spatial transcriptomic technologies, data resources and analysis approaches. Comput Struct Biotechnol J. 2023;21:940-955.
- Joglekar A, et al. A spatially resolved brain region- and cell type-specific isoform atlas of the postnatal mouse brain. Nat Commun. 2021;12(1):463.
- Madissoon E, et al. A spatially resolved atlas of the human lung characterizes a gland-associated immune niche. Nat Genet. 2023;55(1):66-77.
- Wang F, et al. Single-cell and spatial transcriptome analysis reveals the cellular heterogeneity of liver metastatic colorectal cancer. Sci Adv. 2023;9(24):eadf5464.
- Robinson MH, et al. Regulation of antigen-specific T cell infiltration and spatial architecture in multiple myeloma and premalignancy. J Clin Invest. 2023;133(15):e167303.
- Wehrle E, et al. Protocol for preparing formalin-fixed paraffin-embedded musculoskeletal tissue samples from mice for spatial transcriptomics. STAR Protoc. 2024;5(2):103089.
- Sangeetha R, Uma K, Chandavarkar V. Comparison of routine decalcification methods with microwave decalcification of bone and teeth. J Oral Maxillofac Pathol. 2013;17(3):386-391.
- Yip RKH, et al. Profiling the spatial architecture of multiple myeloma in human bone marrow trephine biopsy specimens with spatial transcriptomics. Blood. 2025;146(15):1837-1849.
- Miquelestorena-Standley E, et al. Effect of decalcification protocols on immunohistochemistry and molecular analyses of bone samples. Mod Pathol. 2020;33(8):1505-1517.
- Ambrosi TH, et al. Human skeletal development and regeneration are shaped by functional diversity of stem cells across skeletal sites. Cell Stem Cell. 2025;32(5):811-823.e11.
- 10x Genomics. Visium Spatial Platform. Pleasanton (CA): 10x Genomics. 2026: Available from: https://www.10xgenomics.com/platforms/visium#assays
- Amemiya K, et al. Influence of formalin fixation duration on RNA quality and quantity from formalin-fixed paraffin-embedded hepatocellular carcinoma tissues. Pathol Int. 2023;73(12):593-600.
- Srinivasan M, Sedmak D, Jewell S. Effect of fixatives and tissue processing on the content and integrity of nucleic acids. Am J Pathol. 2002;161(6):1961-1971.
- Nam SK, et al. Effects of fixation and storage of human tissue samples on nucleic acid preservation. Korean J Pathol. 2014;48(1):36-42.
- 10x Genomics. Visium Spatial Gene Expression Reagent Kits for FFPE User Guide. Document CG000407, Revision E. Pleasanton (CA): 10x Genomics. 2026: Available from: https://www.10xgenomics.com/support/spatial-gene-expression-ffpe/documentation/steps/library-construction/visium-spatial-gene-expression-reagent-kits-for-ffpe-user-guide
- Eccher A, et al. Pathology laboratory archives: conservation quality of nucleic acids and proteins for NSCLC molecular testing. J Pers Med. 2024;14(4):333.
- Bai Z, et al. Spatially exploring RNA biology in archival formalin-fixed paraffin-embedded tissues. Cell. 2024;187(23):6760-6779.e24.
- 10x Genomics. Visium CytAssist Spatial Gene Expression for FFPE—Tissue Preparation Guide. Document CG000518, Revision D. Pleasanton (CA): 10x Genomics. 2026: Available from: https://www.10xgenomics.com/support/cytassist-spatial-gene-expression/documentation/steps/tissue-prep/visium-cyt-assist-spatial-gene-expression-for-ffpe-tissue-preparation-guide
- 10x Genomics. Visium CytAssist Spatial Gene Expression Reagent Kits for FFPE User Guide. Document CG000495, Revision G. Pleasanton (CA): 10x Genomics. 2026. Available from: https://www.10xgenomics.com/support/cytassist-spatial-gene-expression/documentation/steps/library-construction/visium-cyt-assist-spatial-gene-expression-reagent-kits-for-ffpe
- Agilent Technologies. High Sensitivity RNA ScreenTape assay for TapeStation systems quick guide. Version A.01.05. Santa Clara (CA): Agilent Technologies. 2024: Available from: https://www.agilent.com/cs/library/usermanuals/public/HS-RNA_QuickGuide.pdf
- Agilent Technologies. Agilent 4200 TapeStation system—System manual. Publication G2991-90000, Version A.02.02. Santa Clara (CA): Agilent Technologies. 2024: Available from: https://download.chem.agilent.com/software/4200_tapestation_user_info_package_v2/tapestation%20user%20information/tapestation%20manuals/agilent%204200%20tapestation%20system%20manual_g2991-90000.pdf
- Larrayoz M, et al. Preclinical models for prediction of immunotherapy outcomes and immune evasion mechanisms in genetically heterogeneous multiple myeloma. Nat Med. 2023;29(3):632-645.
- Wang S. Resolving the bone – optimizing decalcification in spatial transcriptomics and molecular pathology. J Histotechnol. 2025;48(1):68-77.
- Oliveira MF, et al. High-definition spatial transcriptomic profiling of immune cell populations in colorectal cancer. Nat Genet. 2025;57(6):1512-1523.
- Bourgain-Chang E, Kuang X, Cang Z, Nie Q. Reconstructing single-cell resolution from spatial transcriptomics with CellRefiner. Nat Commun. 2026;17(1):3304.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً