تبحث هذه الدراسة في العلاقة بين مرض الذئبة الحمامية الجهازية وفقدان الحمل المتكرر، وتحدد IFI27 كعلامة بيولوجية مرشحة للبحث مستقبلاً.
مقالة بحثية
تحديد IFI27 كعلامة حيوية مرشحة لفقدان الحمل المتكرر في مرض الذئبة الحمامية الجهازية باستخدام العشوائية المندلية والمعلوماتية الحيوية
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
يرتبط مرض الذئبة الحمامية الجهازية (SLE) بنتائج حمل سلبية، ولكن العلاقة السببية بينه وبين الإجهاض المتكرر (RPL) والخصائص الجزيئية المشتركة بينهما لا تزال غير واضحة. دمجت هذه الدراسة بين العشوائية المندلية (MR) ثنائية الاتجاه ذات العينتين وتحليلات المعلوماتية الحيوية للنسخ (transcriptomic bioinformatics) لاستقصاء هذه العلاقة وتحديد المؤشرات الحيوية المشتركة المرشحة. تم اختيار FinnGen وUK Biobank لأنهما يوفران إحصائيات ملخصة لدراسات الارتباط الجيني واسعة النطاق (GWAS) كبيرة وغير متداخلة لسلالات أوروبية. تم تحديد الجينات ذات التعبير التفاضلي (DEGs) من GSE61635 (الدم؛ |log₂ fold change| > 1) وGSE165004 (بطانة الرحم؛ |log₂ fold change| > 0.5) باستخدام قيمة P معدلة < 0.05، متبوعة بالإثراء الوظيفي، وتحليل التفاعل بين البروتينات (PPI)، وفحص الجينات المحورية (hub-gene)، وانحدار LASSO (least absolute shrinkage and selection operator)، والتحقق الخارجي باستخدام GSE50772 وGSE198700، وتحليل منحنى خصائص التشغيل (ROC)، وتحليل إثراء مجموعة الجينات للعينة الواحدة (ssGSEA). ارتبط مرض الذئبة الحمامية الجهازية المتوقع جينيًا بزيادة ذات دلالة إحصائية ولكنها متواضعة كميًا في حالات الإجهاض التلقائي (نسبة الأرجحية [OR] المرجحة بتباين عكسي [IVW] = 1.01، فاصل ثقة [CI] 95% = 1.00–1.02؛ P < 0.001). كانت قوة الأداة كافية، ولم تكشف تحليلات الحساسية عن أي تباين جوهري، أو تعددية تأثيرات اتجاهية (directional pleiotropy)، أو متغير واحد مؤثر. كانت 59 من الجينات ذات التعبير التفاضلي المشتركة مُثراة في الاستجابات المناعية المضادة للفيروسات، والتصاق الخلايا، والعمليات المرتبطة بموت الخلايا المبرمج. أظهر IFI27 تعبيرًا مفرطًا باستمرار في دم مرضى SLE، ولكن تعبيرًا منخفضًا في بطانة رحم وزغاوات مشيمية مرضى RPL، بينما افتقر CXCL11 إلى تحقق خارجي متسق. أسفرت تحليلات ROC الاسترجاعية عن مساحة تحت المنحنى (AUCs) بلغت 0.822 لمرض SLE و0.872 لمرض RPL. وأظهرت درجات ssGSEA المستنتجة حاسوبيًا وجود ارتباطات بين تعبير IFI27 والعديد من بصمات الخلايا المناعية، بما في ذلك الخلايا التائية المساعدة 2 (Th2). تحدد هذه النتائج IFI27 كمؤشر حيوي مرشح مشترك بين SLE وRPL؛ ومع ذلك، فإن الدراسات السريرية والتجريبية الاستشرافية مطلوبة للتحقق من أهميته البيولوجية والسريرية.
المقدمة
يُعد الذئبة الحمامية الجهازية (SLE) مرضاً مناعياً ذاتياً معقداً يتميز بإصابة أنظمة متعددة في الجسم واختلال مزمن في التنظيم المناعي1. وتعزى التشوهات المرضية في مرض SLE بشكل أساسي إلى ضعف الاستجابات المناعية التكيفية وترسب المعقدات المناعية (مستضد-جسم مضاد)، مما يؤدي إلى إصابة الأنسجة وتلف الأعضاء بوساطة مناعية ذاتية2,3. ويبلغ معدل الإصابة العالمي بمرض SLE حوالي 5.14 (1.4–15.13) حالة لكل 100,000 شخص-سنة، مع معدل إصابة تقديري يبلغ 8.82 (2.4–25.99) حالة لكل 100,000 شخص-سنة بين النساء4. ويصيب مرض SLE الأفراد من جميع الأعمار، ولكنه يحدث بشكل غالب لدى النساء في سن الإنجاب5,6. وتكون المريضات الحوامل المصابات بمرض SLE أكثر عرضة لمخاطر نتائج الحمل السلبية، بما في ذلك الإجهاض المتكرر، وولادة جنين ميت، والولادة المبكرة، وتأخر النمو داخل الرحم7,8. ويُعرف فقدان الحمل المتكرر (RPL) بأنه حدوث إجهاضين أو أكثر قبل الأسبوع 20–24 من الحمل9. ويبلغ معدل انتشاره المبلغ عنه حوالي 2.6%10، مما يجعله مضاعفة إنجابية ذات أهمية سريرية. وتعاني حوالي 20% من المريضات الحوامل المصابات بمرض SLE من الإجهاض11، ويُصنف مرض SLE كعامل خطر مهم للإصابة بـ RPL12. وتشمل الآليات المقترحة التغيرات الهرمونية واختلال التنظيم المناعي. وقد تم بحث المؤشرات الحيوية مثل الأجسام المضادة للكارديوليبين ومضاد التخثر الذاتي كمتنبئات محتملة لنتائج الحمل السلبية في المريضات المصابات بمرض SLE11. قد ترتبط هذه الأجسام المضادة الذاتية بخلايا الأرومة الغازية في المشيمة، وتغير من إشارات الأرومة الغازية وتكاثرها وغزوها، وتعدل إفراز الهرمونات والسيتوكينات، وتزيد من الموت الخلوي المبرمج، مما يساهم في تدهور نتائج الحمل13. بالإضافة إلى ذلك، فإن بيتا-2 جلايكوبروتين I (β2-GPI)، وهو مستضد رئيسي في متلازمة مضادات الفوسفوليبيد، يتم التعبير عنه في أنسجة المشيمة. ويؤدي ارتباط الأجسام المضادة لـ anti-β2-GPI بـ β2-GPI إلى تثبيط نمو وتمايز الأرومة الغازية، مما يؤدي إلى عيوب في المشيمة. كما يعزز هذا التفاعل بيئة محفزة للالتهابات تتميز بإنتاج سيتوكينات تخريبية وتنشيط المتممة، مما يساهم في حدوث تخثر في المشيمة وإجهاض متكرر14,15. ومع ذلك، فقد افتقرت الدراسات السابقة في كثير من الأحيان إلى تحليلات شاملة للأنسجة التناسلية المحلية، مثل الساقط، مما حد من القدرة على ربط المؤشرات الحيوية الجهازية بالتغيرات المرضية المحلية. علاوة على ذلك، لا تزال إدارة الحمل المصحوب بمرض SLE والوقاية من نتائج الحمل السلبية تمثل تحدياً. وتساهم القابلية الوراثية في تطور مرض SLE، كما ارتبط التباين الوراثي أيضاً بالإمراض الخاص بـ RPL16,17. ورغم ذلك، لا يزال من غير الواضح ما إذا كانت هناك علاقة سببية بين SLE و RPL، وكذلك الآليات الجزيئية والجينات المشتركة التي تكمن وراء تعايشهما.
تُعد العشوائية المندلية (MR) نهجاً راسخاً للاستدلال السببي، حيث تستخدم المتغيرات الجينية كمتغيرات أداة لتقدير التأثيرات السببية للتعرضات على نتائج المرض18. ومن خلال استغلال العلاقة بين النمط الجيني والنمط الظاهري، تقلل العشوائية المندلية من الانحياز الناتج عن العوامل المربكة والسببية العكسية مقارنة بالدراسات الرصدية التقليدية. وبالتوازي مع ذلك، مكنت التطورات في منصات المصفوفات الدقيقة الجينومية والتسلسل عالي الإنتاجية التحليلات المعلوماتية الحيوية من تحديد المؤشرات الحيوية التشخيصية المرشحة والأهداف العلاجية من خلال التنميط النسخي. وقد يوفر دمج هذه النهج المتكاملة فهماً أكثر شمولاً للعلاقة بين الذئبة الحمامية الجهازية (SLE) ومتلازمة الإجهاض المتكرر (RPL) من خلال الجمع بين الأدلة الجينية السببية وأنماط التعبير الجيني المرتبطة بالمرض. وبناءً على ذلك، هدفت هذه الدراسة إلى استقصاء العلاقة السببية المحتملة بين SLE وRPL، وتحديد المؤشرات الحيوية والمسارات البيولوجية المرشحة المشتركة، وتحديد أولويات الأهداف للتحقق منها مستقبلاً. ولتحقيق هذه الأهداف، تم تحديد سير العمل التحليلي مسبقاً على النحو التالي: العشوائية المندلية ثنائية الاتجاه لتقييم الاتجاه السببي؛ تحليلات التعبير الجيني التفاضلي المستقلة متبوعة بالتكامل النسخي؛ تحليل شبكة التفاعل بين البروتين والبروتين (PPI) وانحدار عامل الاختيار والتقليص المطلق الأدنى (LASSO) لتحديد أولويات المؤشرات الحيوية؛ التحقق الخارجي من التعبير وتحليل خصائص تشغيل المستقبل (ROC)؛ وتحليل إثراء مجموعة الجينات للعينة الواحدة (ssGSEA) لتقييم الارتباطات مع بصمات الخلايا المناعية. وهذا سير العمل المتسلسل ملخص في الشكل 1.
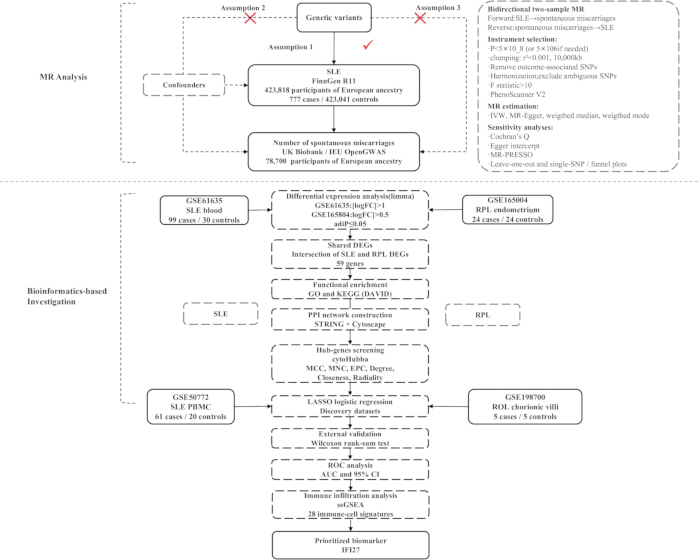
الشكل 1. تصميم الدراسة وسير العمل التحليلي.
يوضح اللوح العلوي تحليل العشوائية المندلية (MR) ثنائي الاتجاه والعينات الثنائية لتقييم الارتباط بين الذئبة الحمامية الجهازية (SLE) وعدد حالات الإجهاض التلقائي باستخدام الإحصاءات الملخصة لدراسة الارتباط على مستوى الجينوم (GWAS). ويتم تلخيص عملية اختيار الأدوات، وتجميع عدم التوازن الارتباطي، وتحليلات العشوائية المندلية (MR)، وتحليلات الحساسية. ويوضح اللوح السفلي سير عمل المعلوماتية الحيوية، بما في ذلك تحليل التعبير التفاضلي، وتحديد الجينات ذات التعبير التفاضلي المشتركة (DEGs)، وتحليل الإثراء الوظيفي، وبناء شبكة التفاعل بين البروتينات (PPI)، وفحص الجينات المحورية، وانحدار مشغل تقليص واختيار المطلقات الأقل (LASSO)، والتحقق الخارجي، وتحليل خصائص تشغيل المستقبل (ROC)، وتحليل إثراء مجموعة الجينات للعينة الواحدة (ssGSEA)، وتحديد أولوية المؤشر الحيوي المرشح IFI27. يرمز IVW إلى المرجح بتباين عكسي؛ وKEGG إلى موسوعة كيوتو للجينات والجينومات؛ وGO إلى الوجود الجيني. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
البروتوكول
لم تكن الموافقة الأخلاقية مطلوبة للدراسة الحالية لأنها تضمنت فقط تحليلات ثانوية لإحصائيات ملخصة من دراسات الارتباط الجينومي الكامل (GWAS) مجهولة الهوية ومتاحة للعموم، ومجموعات بيانات ترانسكريبتومية. لم يتم استقطاب مشاركين جدد، ولم يتم جمع عينات بيولوجية، ولم يتم الوصول إلى أي معلومات تعريفية على مستوى الأفراد. وأفادت الدراسات الأصلية لكل من FinnGen وUK Biobank وGene Expression Omnibus بأنه قد تم الحصول على الموافقة الأخلاقية والموافقة المستنيرة وفقاً للمتطلبات المؤسسية والوطنية والمتعلقة بقواعد البيانات الخاصة بكل منها. وقد تم الوصول إلى جميع مجموعات البيانات المستخدمة في هذه الدراسة وتحليلها وفقاً لسياسات استخدام قواعد البيانات المطبقة، وشروط الوصول إلى البيانات، والإرشادات الأخلاقية. ولم يحاول المؤلفون إعادة تحديد هوية أي مشارك. وبناءً على ذلك، لم تكن هناك حاجة لموافقة مستنيرة مكتوبة إضافية لهذا التحليل الثانوي. يتكون محتوى هذه الدراسة من جزأين: تحليل العشوائية المندلية (MR) والتحليل المعلوماتي الحيوي (الشكل 1). كانت هذه الدراسة حاسوبية بالكامل واستخدمت مجموعات بيانات ملخصة من GWAS والترانسكريبتوم متاحة للعموم، ولم يتم استخدام أي كواشف أو مستهلكات مختبرية.
تحليل التوزيع العشوائي المندلي (MR)
مصادر البيانات، واكتسابها، والمعالجة المسبقة لإحصائيات ملخص دراسة الارتباط الجينومي الكامل (GWAS):
تم الحصول على إحصائيات ملخص GWAS لمرض الذئبة الحمامية من إصدار FinnGen 11 (finngen_R11_L12_LUPUS; RRID:SCR_022254)، وهي مجموعة سكانية فنلندية. تم تحديد النمط الظاهري باستخدام كود ICD-10 L93 وشملت 423,818 مشاركاً، تضم 777 حالة و423,041 ضابطاً. تم تنزيل ملف إحصائيات ملخص FinnGen من بوابة البيانات العامة لـ FinnGen بتنسيق مضغوط ومفصول بعلامات جدولة، واستيراده إلى برنامج R باستخدام دالة read_exposure_data() أو read_outcome_data() في حزمة TwoSampleMR، اعتماداً على ما إذا كانت مجموعة البيانات قد استُخدمت كعرض أو كنتيجة. تم الاحتفاظ بـ rsID، والكروموسوم، والموقع الجينومي، والأليل المؤثر، والأليل الآخر، وتكرار الأليل المؤثر، ومعامل beta، والخطأ المعياري، وقيمة P للاقتران.
تم الحصول على الإحصاءات الملخصة لعدد حالات الإجهاض التلقائي من UK Biobank عبر مورد IEU OpenGWAS (ukb-b-419؛ RRID:SCR_012815)، والتي شملت 78,700 مشاركاً. في التحليل الأمامي، تم استرجاع ارتباطات تعدد أشكال النوكليوتيدات المفردة (SNPs) المختارة من FinnGen مع النتيجة باستخدام extract_outcome_data(outcomes = "ukb-b-419", proxies = FALSE). وفي التحليل العكسي، تم استرجاع الـ SNPs المرتبطة بالذئبة الحمامية باستخدام extract_instruments(outcomes = "finngen_R11_L12_LUPUS", clump = FALSE)، وبعد ذلك تم استخراج ارتباطات الـ SNP المقابلة من ملف الإحصاءات الملخصة لـ UK Biobank. وتتلخص خصائص مجموعات بيانات GWAS المستخدمة في تحليلات MR ثنائية الاتجاه في الجدول 1.
| سمة | حجم العينة | الأصل السلالي | اتحاد (كونسورتيوم) | السنة | معرّف مجموعة بيانات دراسة الارتباط الجينومي الكامل (GWAS) |
| الذئبة الحمامية | 4,23,818 | أوروبي | FinnGen (RRID: SCR_022254) | 2024 | finngen_R11_L12_الذئبة_الحمامية |
| عدد حالات الإجهاض التلقائي | 78,700 | أوروبي | UK Biobank (RRID: SCR_012815) | 2018 | ukb-b-419 |
الجدول 1: إحصائيات ملخصة لدراسة الارتباط على مستوى الجينوم (GWAS) المستخدمة في تحليل العشوائية المندلية ثنائية الاتجاه.
يلخص الجدول مجموعات بيانات دراسة الارتباط على مستوى الجينوم المتاحة علنًا والتي استُخدمت كمصادر للتعرض والنتيجة في تحليلات العشوائية المندلية الأمامية والعكسية، بما في ذلك حجم العينة، والأصل العرقي، ومصدر البيانات، وسنة إصدار البيانات، ومعرف مجموعة البيانات.
تم اختيار FinnGen وUK Biobank نظراً لتوفيرهما مجموعات بيانات ضخمة ومتاحة للعامة، يغلب عليها الأصل الأوروبي، وهي مشتقة من مجتمعات مصدرية غير متداخلة، كما أنها تحتوي على تغطية كافية للمتغيرات لإجراء دراسة المندلية العشوائية (MR) ذات العينتين. ولم يتم الإبلاغ عن أي تداخل بين عينات التعرض والنتائج. ونظراً لاستخدام البيانات على مستوى الملخصات فقط، لم يتم الوصول إلى بيانات الأنماط الجينية على المستوى الفردي، ولم يتم إجراء أي تسوية إضافية على مستوى المشاركين، كما لم يستبعد الباحثون الحاليون أي مشاركين. وقد اعتمدنا على إجراءات مراقبة الجودة على مستوى العينات والمتغيرات التي نفذتها اتحادات دراسات الارتباط الجينومي الواسع (GWAS) الأصلية. وخلال التحليل الحالي، تم إجراء مراقبة جودة إضافية على مستوى المتغيرات من خلال تصفية الدلالة الإحصائية، وتجميع عدم التوازن الارتباطي، وتنسيق الأليلات، وتقييم قوة الأداة، وفحص تعدد الأنماط الظاهرية، كما هو موضح أدناه.
يورد الإصدار 11 من FinnGen المواقع الجينومية وفقاً لـ GRCh38/hg38، بينما تستخدم مجموعات البيانات المنسقة في IEU OpenGWAS والمصدر المرجعي لاختلال التوازن الارتباطي تعليقات توضيحية للمتغيرات متوافقة مع GRCh37. وبناءً على ذلك، تمت مطابقة متغيرات التعرض والنتيجة بشكل أساسي من خلال معرفات rsIDs المستقرة بدلاً من إحداثيات موقع الكروموسوم. ولم يتم إجراء أي مطابقة موقعية مباشرة بين الإصدارات المختلفة. كما تم استبعاد المتغيرات التي تفتقر إلى معرف rsID غير غامض أو التي تحتوي على معلومات أليل غير متسقة عبر مجموعات البيانات قبل تحليل MR. تستخدم الإحصائيات الملخصة للإصدار 11 من FinnGen نظام GRCh38، في حين أن بيانات OpenGWAS منسقة وفقاً لاتفاقية التسلسل المرجعي المستخدمة في Build 37. ولذلك، تعد المطابقة بواسطة rsID أمراً هاماً عند دمج هذين المصدرين.
تصميم دراسة MR:
لقد التزمنا بدقة بإرشادات STROBE-MR (الملف التكميلي 1)19. تم استخدام تصميم MR ثنائي الاتجاه وعينتين لتقييم العلاقة بين مرض الذئبة الحمامية المتنبأ به جينيًا وعدد حالات الإجهاض التلقائي. في التحليل الأمامي، تم التعامل مع مرض الذئبة الحمامية كعامل تعرض، وعدد حالات الإجهاض التلقائي كحصيلة. وفي التحليل العكسي، تم تبديل عامل التعرض والحصيلة، وتكرار سير العمل الكامل لاختيار الأدوات، وتكتل عدم التوازن الارتباطي، وتنسيق البيانات، وتقدير السببية، وتحليل الحساسية. استُخدمت تعدد أشكال النوكليوتيدات المفردة (SNPs) كمتغيرات أدوات (IVs). نُفذ سير العمل الكامل بالترتيب التالي: الحصول على إحصائيات ملخص GWAS وتنسيقها؛ اختيار SNPs المرتبطة بالتعرض؛ إزالة المتغيرات المكررة أو غير المصنفة بالكامل؛ تكتل عدم التوازن الارتباطي؛ استخراج ارتباطات الحصيلة المقابلة؛ استبعاد SNPs المرتبطة مباشرة بالحصيلة؛ تنسيق أليلات التعرض والحصيلة؛ حساب قوة الأداة؛ فحص الأنماط الظاهرية المربكة المحتملة؛ تقدير التأثيرات السببية؛ تقييم التغاير وتعدد التأثيرات الأفقي؛ الكشف عن القيم المتطرفة باستخدام مجموع المربعات المتبقية وتعدد التأثيرات للعشوائية المندلية (MR-PRESSO)؛ وتحليلات الحساسية بطريقة "ترك واحد" (leave-one-out) وSNP الواحد. تم تنفيذ جميع تحليلات MR باستخدام R الإصدار 4.4.2 (RRID:SCR_001905)، وTwoSampleMR الإصدار 0.6.6 (RRID:SCR_019010)، وMRPRESSO الإصدار 1.0 (RRID:SCR_023697)، وforestploter الإصدار 1.1.2. استند تحليل MR إلى ثلاثة افتراضات أساسية. أولاً، وفقاً لافتراض الصلة، يجب أن تكون SNPs المختارة مرتبطة بقوة بعامل التعرض. ثانيًا، وفقاً لافتراض الاستقلالية، يجب أن تكون SNPs المختارة مستقلة عن العوامل التي تربك الارتباط بين التعرض والحصيلة. ثالثًا، وفقاً لافتراض تقييد الاستبعاد، يجب أن تؤثر SNPs المختارة على الحصيلة فقط من خلال عامل التعرض20 (الشكل 1).
طرق اختيار تعدد أشكال النوكليوتيدات المفردة:
تم إجراء اختيار الأدوات وفقاً للترتيب التالي: (1) اختيار تعددات أشكال النوكليوتيدات المفردة (SNPs) المرتبطة بالتعرض عند P < 5 × 10⁻⁸؛ وعندما كان عدد الأجهزة غير كافٍ، استُخدِم P < 5 × 10⁻⁶؛ (2) استخدم دالة ()clump_data لإجراء تجميع عدم التوازن الارتباطي عند R2 < 0.001 ومسافة جينية قدرها 10,000 كيلو قاعدة (kb)، مع تخفيف المعايير إلى R2 < 0.01 ضمن 5,000 كيلوبايت فقط عندما يكون ذلك ضرورياً للاحتفاظ بمجموعة أدوات قابلة للتحليل؛ (3) تصفية تعدد أشكال النوكليوتيدات المفردة (SNPs) المرتبطة بالنتيجة بشكل ملحوظ باستخدام عتبة قدرها P = 5 × 10⁻⁵؛ (٤) استخدام دالة ()harmonise_data لمطابقة أليلات التعرض والنتيجة واستبعاد المتغيرات المتناظرة أو الغامضة؛ (٥) حساب قوة الأداة كـ ف = β2/SE2، واستبعاد تعدد أشكال النوكليوتيدات المفردة (SNPs) التي تتسم بـ ف < 10؛ و(6) فحص تعددات النيوكليوتيدات المفردة (SNPs) المستبقاة باستخدام PhenoScanner V2 للبحث عن أنماط ظاهرية قد تسبب تداخلاً في العلاقة بين الذئبة الحمامية الجهازية (SLE) وفقدان الحمل.21قد تكون الأجسام المضادة للفوسفوليبيد (aPL) عامل خطر مشتركًا لكل من مرض الذئبة الحمامية الجهازية (SLE) وعدد حالات الإجهاض التلقائي. تم البحث عن تعدد أشكال النوكليوتيدات المفردة (SNPs) الفردية في قاعدة بيانات PhenoScanner V2. كما تم الاستعلام عن جميع تعدد أشكال النوكليوتيدات المفردة المرشحة في PhenoScanner V2 باستخدام كتالوج GWAS الافتراضي لاسترجاع جميع الارتباطات المبلغ عنها في دراسات الارتباط الجينومي الواسع (GWAS). وقد حُدد عتبة الدلالة عند P < 1 × 10⁻5، واستُخدم إصدار الجينوم المرجعي الافتراضي (GRCh37). ونظراً لأن مجتمع الدراسة كان من أصول أوروبية، فقد تم تفعيل البحث عن المتغيرات البديلة (proxy variant searching) باستخدام اللوحة المرجعية الأوروبية (proxies = "يورو")، مع حد عتبة لـ LD يبلغ R2 > 0.8 ضمن نافذة قدرها 1,000 كيلوكالباس (kb). وتم الإبقاء على جميع معاملات البحث الأخرى في إعداداتها الافتراضية. واعتُبرت تعددات أشكال النوكليوتيدات المفردة (SNPs) التي أظهرت ارتباطات ذات دلالة إحصائية مع العامل المربك المحدد مسبقاً، وهو الأجسام المضادة للفوسفوليبيد (aPL)، ذات تأثيرات متعددة محتملة (pleiotropic)، واستُبعدت من المجموعة النهائية للمتغيرات الأداتية لتقليل انتهاك فرضية تقييد الاستبعاد في العشوائية المندلية. وتُدرج تعددات أشكال النوكليوتيدات المفردة الأداتية التي تم الإبقاء عليها لتحليلات العشوائية المندلية الأمامية والعكسية في الجداول التكميلية 1 و2على التوالي.
التحليل الإحصائي:
بعد اختيار الأدوات وتوحيد الأليلات، حُسبت تقديرات العلاقة السببية باستخدام دالة mr() في حزمة TwoSampleMR. وقد نُفذ سير العمل التحليلي وفق الترتيب التالي: أولاً، قُدِّر التأثير السببي الإجمالي باستخدام أربع طرق من تحليل العشوائية المندلية (MR): ترجيح تباين العكس (IVW)، وانحدار MR-Egger، والوسيط المرجح، والمنوال المرجح. وأُبلغت تقديرات التأثير لعدد حالات الإجهاض التلقائي ومرض الذئبة الحمامية الجهازية (SLE) في شكل نسب أرجحية مع فترات ثقة 95% المقابلة و P القيم. وقد تم تحديد طريقة المتوسط المرجح العكسي (IVW) كتحليل أساسي لأنها توفر قوة إحصائية عالية عندما تكون جميع تعددات الأشكال للنيوكليوتيدات المفردة (SNPs) المدرجة متغيرات أداتية صالحة، وفي حالة غياب تعدد التأثيرات الأفقي. ومع ذلك، قد يكون تقدير IVW متحيزاً عند وجود تعدد تأثيرات أفقي.22استُخدم تحليل انحدار MR-Egger بشكل أساسي لتقييم الاستنتاجات السببية في ظل وجود تعددية تأثيرية أفقية محتملة.23يتطلب نهج الوسيط المرجح أن يكون ما لا يقل عن 50% من الوزن التحليلي ناشئاً من متغيرات أدوات صالحة. وتكون هذه الطريقة مثالية في حالة وجود تغاير مع غياب التعددية الشكلية الأفقية.24يحدد المنوال المرجح مجموعات من المتغيرات المساعدة ذات التأثيرات السببية المتشابهة، ويقدر التأثير بناءً على المجموعة الأكبر.25تُعرض تقديرات التأثير التي تم الحصول عليها باستخدام طرق التوزيع العشوائي المندلي (MR) الأربعة في الشكل 2ثانياً، تم تقييم التباين بين تقديرات السببية الخاصة بكل تعدد أشكال النوكليوتيدات المفردة (SNP) باستخدام اختبار كوشران Q (Cochran's Q test) الذي تم تنفيذه عبر دالة mr_heterogeneity(). وتمثل إحصائية Q المجموع المرجح لمربعات انحرافات تقديرات كل SNP منفرد عن التقدير السببي الإجمالي. ويقوم اختبار Q بـ P قيمة < اعتُبِرت القيمة 0.05 دليلاً على التباين، وفي هذه الحالة تم تطبيق نموذج الوزن العكسي للمتغيرات الأداتية (IVW) ذو التأثيرات العشوائية. وفي حالة عدم وجود تباين معنوي، استُخدِم نموذج الوزن العكسي للمتغيرات الأداتية (IVW) ذو التأثيرات الثابتة.26ثالثاً، تم تقييم تعدد الأنماط الظاهرية الأفقي الموجه باستخدام اختبار تقاطع MR-Egger الذي تم تنفيذه بواسطة دالة ()mr_pleiotropy_test. ويشير وجود تقاطع يختلف اختلافاً جوهرياً عن الصفر عند P < اعتُبرت القيمة 0.05 دليلاً على وجود تعدد تأثيرات أفقي توجيهي. رابعاً، نُفذ إجراء MR-PRESSO باستخدام دالة mr_presso() في حزمة MRPRESSO (RRID:SCR_023697) للكشف عن تعدد أشكال النيوكليوتيدات المفردة (SNPs) ذات تأثيرات تعددية شاذة.27وعند اكتشاف القيم المتطرفة، تم استبعادها وإعادة إجراء التحليل السببي باستخدام الأدوات المتبقية. واستُخدم الاختبار العالمي لـ MR-PRESSO لتقييم تعدد التأثيرات الأفقي العام، بينما أُخذ اختبار التشوه في الاعتبار عند تقييم ما إذا كان استبعاد القيم المتطرفة قد أحدث تغييراً جوهرياً في التقدير السببي. خامساً، أُجري تحليل الحساسية باستبعاد عنصر واحد (leave-one-out sensitivity analysis) باستخدام دالة mr_leaveoneout()؛ حيث تم استبعاد كل تعدد أشكال النوكليوتيدات المفردة (SNP) بالتتابع، وإعادة حساب التقدير السببي المجمّع باستخدام الـ SNPs المتبقية. وتم تصور النتائج باستخدام mr_leaveoneout_plot() لتحديد ما إذا كانت الارتباطات العامة مدفوعة بشكل غير متناسب بأداة واحدة. سادساً، تم استخراج تقديرات خاصة بكل SNP على حدة باستخدام دالة mr_singlesnp()، واستُخدمت هذه التقديرات لإنشاء مخططات القمع (funnel plots) عبر mr_funnel_plot() لتقييم عدم التماثل بصرياً، والذي قد يُعزى إلى تعدد التأثيرات الأفقي الموجه. كما أُنشئت مخططات الغابة الملخصة (Summary forest plots) باستخدام forestploter (الإصدار 1.1.2) لعرض تقديرات التأثير وفترات الثقة التي تم الحصول عليها من طرق المندلية العشوائية (MR) المختلفة. ويظهر مخطط التشتت لـ MR الأمامي، ومخطط الغابة الخاص بالـ SNPs، وتحليل استبعاد عنصر واحد، ومخطط القمع في الأشكال التوضيحية التكميلية ١-٤على التوالي.
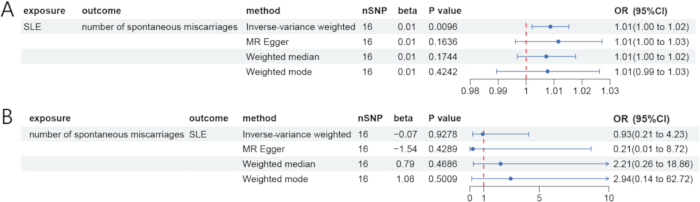
الشكل 2نتائج تحليل العشوائية المندلية ثنائية الاتجاه.
(أ) مخطط غابة لتحليل العشوائية المندلية (MR) الأمامي، حيث يمثل الذئبة الحمامية الجهازية (SLE) التعرض، ويمثل عدد حالات الإجهاض التلقائي النتيجة. (ب) مخطط غابة لتحليل العشوائية المندلية العكسي، حيث يمثل عدد حالات الإجهاض التلقائي التعرض، وتمثل الذئبة الحمامية الجهازية النتيجة. عُرضت تقديرات التأثير في شكل نسب أرجحية (ORs) مع فترات ثقة (CIs) بنسبة 95% لطرق المرجح بتباين عكسي، وMR-Egger، والوسيط المرجح، والمنوال المرجح. SNP، تعدد أشكال النيوكليوتيدات المفردة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
اعتُبرت العلاقة السببية مدعومة عندما كانت تقديرات IVW ذات دلالة إحصائية عند P < 0.05، وأظهرت تقديرات MR-Egger، والوسيط المرجح، والمنوال المرجح اتجاهات متوافقة مع تقديرات IVW، ولم تتغير النتائج بشكل جوهري بفعل تحليل التباين، أو تعدد التأثيرات، أو MR-PRESSO، أو تحليلات الحساسية باستبعاد متغير واحد (leave-one-out). كانت جميع الاختبارات الإحصائية ثنائية الجانب.
التحليل المعلوماتي الحيوي
بيانات المصفوفات الدقيقة:
تم الحصول على مجموعات البيانات النسخية من قاعدة بيانات Gene Expression Omnibus (GEO; RRID:SCR_005012)28. وقد تم تنزيل ملفات Series Matrix المعالجة، والبيانات الوصفية للعينات، وملفات تعليقات المنصة لكل من GSE61635 و GSE165004 و GSE50772 و GSE198700. تظهر الجدول 2 ملخصاً للمنصة، ومصدر النسيج، وحجم العينة، وفئة التحليل لكل مجموعة بيانات. ونظراً لأن مجموعات البيانات قد أُنتجت من أنسجة ومنصات مصفوفات دقيقة مختلفة، فقد تمت معالجة كل مجموعة بيانات وتحليلها بشكل مستقل. لم يتم دمج مصفوفات التعبير من مجموعات البيانات المختلفة مباشرة، ولم يتم تطبيق أي تصحيح للدفعات عبر المنصات. وقد أُجري تكامل مجموعات البيانات على مستوى رمز الجين فقط بعد إتمام تحليل التعبير التفاضلي بشكل مستقل داخل كل مجموعة بيانات استكشافية.
| مجموعة بيانات GEO | المرض | المنصة | النسيج (Homo sapiens) | الحالات | المجموعات الضابطة | نوع التجربة | المساهم | فئة مجموعة البيانات |
| GSE61635 | الذئبة الحمامية الجهازية (SLE) | GPL570 | الدم الكامل | 99 | 30 | مصفوفة تحليل التعبير الجيني | Greidinger EL | مجموعة بيانات الاستكشاف |
| GSE165004 | فقدان الحمل المتكرر (RPL) | GPL16699 | بطانة الرحم | 24 | 24 | مصفوفة تحليل التعبير الجيني | Keleş ID29 | مجموعة بيانات الاستكشاف |
| GSE50772 | الذئبة الحمامية الجهازية (SLE) | GPL570 | الخلايا الوحيدة النواة في الدم المحيطي (PBMCs) | 61 | 20 | مصفوفة تحليل التعبير الجيني | Kennedy WP30 | مجموعة بيانات التحقق |
| GSE198700 | فقدان الحمل المتكرر (RPL) | GPL13534 | الزغابات الكوريونية | 5 | 5 | مصفوفة تحليل التعبير الجيني | Li Y31 | مجموعة بيانات التحقق |
الجدول 2: مجموعات البيانات النسخية المستخدمة في التحليلات المعلوماتية الحيوية.
يلخص الجدول مجموعات البيانات النسخية من مستودع تعبير الجينات (GEO) المشمولة في تحليلات الاكتشاف والتحقق، بما في ذلك المرض، ومنصة المصفوفات الدقيقة، ومصدر النسيج، وحجم العينة، ونوع التجربة، والمساهم في الدراسة الأصلية، وفئة مجموعة البيانات.
أُنتجت مجموعة البيانات GSE61635 باستخدام منصة مصفوفات Affymetrix Human Genome U133 Plus 2.0 (GPL570)، وتضمنت 99 مصفوفة دم كامل من مرضى يعانون من SLE، بما في ذلك زيارات متكررة لبعض المرضى، و30 مصفوفة من ضوابط صحية مستقلة. خضعت مصفوفة التعبير المودعة لتصحيح قوي لمتوسط الخلفية متعدد المصفوفات، وتسوية الكميات، وتلخيص مجموعات المجسات، وتحويل log2 من قبل الباحثين الأصليين. وبناءً على ذلك، لم يتم إجراء تصحيح ثانٍ للخلفية أو تسوية للكميات. استُخرجت معرفات المرضى من البيانات الوصفية لـ GEO واحتُفظ بها لنمذجة المقاييس المتكررة.
تم إنشاء GSE165004 باستخدام منصة المصفوفات الدقيقة Agilent SurePrint G3 Human Gene Expression v2 8×60K (GPL16699). احتوت مجموعة البيانات الكاملة على 24 ضابطاً من الخصوبين، و24 مريضاً يعانون من RPL، و24 مريضاً يعانون من عقم غير مفسر. تم تضمين عينات RPL الـ 24 وعينات الضوابط الخصوبين الـ 24 التي جُمعت في الأيام 19-21 من الدورة الشهرية فقط؛ بينما استُبعدت عينات العقم غير المفسر الـ 24 لأنها كانت خارج نطاق المقارنة المحددة مسبقاً29. استُخدمت مصفوفة التعبير المُطبعة من قبل المودع، ولم يتم تطبيق أي تطبيع إضافي بين المصفوفات بعد التأكد من توزيعات العينات القابلة للمقارنة باستخدام المخططات الصندوقية ومخططات الكثافة.
استُخدمت مجموعة البيانات GSE50772 كمجموعة تحقق مستقلة لمرض الذئبة الحمامية الجهازية (SLE)، وشملت عينات من الخلايا أحادية النواة في الدم المحيطي من 61 مريضاً مصاباً بـ SLE و20 شخصاً من الأصحاء كمجموعة ضابطة، وقد تم إنتاجها باستخدام GPL57030. أما مجموعة البيانات GSE198700 فقد تم إنتاجها باستخدام GPL13534، وتحتوي على عينات من الزغابات الكوريونية من خمس مريضات يعانين من الإجهاض المتكرر (RPL) وخمس حالات ضابطة من الإجهاض الاختياري31. تم استيراد مصفوفة التعبير المودعة بالكامل وتحويلها مرة واحدة باستخدام log2(x + 1) نظراً لأن قيم التعبير المودعة كانت مقدمة بمقياس غير لوغاريتمي. طُبق هذا التحويل على مصفوفة التعبير الكاملة قبل إجراء مراقبة الجودة على مستوى العينة، وتوصيف المجسات، والتلخيص على مستوى الجين، والتحقق من الجينات المرشحة، وتحليل التعبير التفاضلي، واختبار مقارنة المجموعات، وتحليل منحنى خصائص تشغيل المستقبل (ROC). لم يتم تحويل الجينات المرشحة بشكل منفصل، ولم يُجرَ أي تحويل لوغاريتمي إضافي خلال تحليلات التحقق اللاحقة. وبالنسبة لجميع مجموعات البيانات، تمت مراجعة هويات العينات، وحالة المرض، وأصل النسيج، وتسميات المجموعات ومطابقتها مع البيانات الوصفية المقابلة في قاعدة بيانات GEO قبل التحليل. تضمنت مراقبة الجودة تقييم أحجام المكتبات أو توزيعات التعبير، والمخططات الصندوقية لكل عينة، وتحليل المكونات الرئيسية، والتجميع الهرمي، والخرائط الحرارية لمسافات العينات. ولم يتم استبعاد أي عينات إضافية بعد تقييم مراقبة الجودة.
تحليل التعبير التفاضلي:
أُجريت تحليلات التعبير التفاضلي بشكل مستقل لكل من GSE61635 وGSE165004 باستخدام limma الإصدار 3.60.6 (RRID:SCR_010943). نُظمت جميع مصفوفات التعبير بحيث تكون الجينات في الصفوف والعينات في الأعمدة. حُدد عتبة التعبير التفاضلي عند |log₂ مقدار التغير > 1 لـ GSE61635 و |log₂ معامل التغير > 0.5 لـ GSE165004، مع تعديل بنجاميني-هوخبيرج (BH) P < 0.05. تم إنشاء مخططات البركان (Volcano plots) باستخدام ggplot2 الإصدار 3.5.1 (RRID:SCR_014601). أما الخرائط الحرارية لأكثر 50 جيناً من الجينات ذات التعبير التفاضلي (DEGs) أهمية، فقد تم ترتيبها حسب القيمة المعدلة لـ P تَم توليد القيم باستخدام pheatmap الإصدار 1.0.12 (RRID:SCR_016418). وحُددت الجينات ذات التعبير التفاضلي (DEGs) المشتركة عن طريق تقاطع رموز الجينات الرسمية من قوائم الجينات ذات التعبير التفاضلي ذات الدلالة لكل من الذئبة الحمراء الجهازية (SLE) ومتلازمة فقدان الجنين المتكرر (RPL) باستخدام دالة intersect() الأساسية في لغة R، وجرى تصورها باستخدام ggvenn الإصدار 0.1.16 (RRID:SCR_025300). وتظهر الخرائط الحرارية للتعبير التفاضلي، ومخططات البركان، وتقاطع قوائم الجينات ذات التعبير التفاضلي للذئبة الحمراء الجهازية ومتلازمة فقدان الجنين المتكرر في الشكل 3.
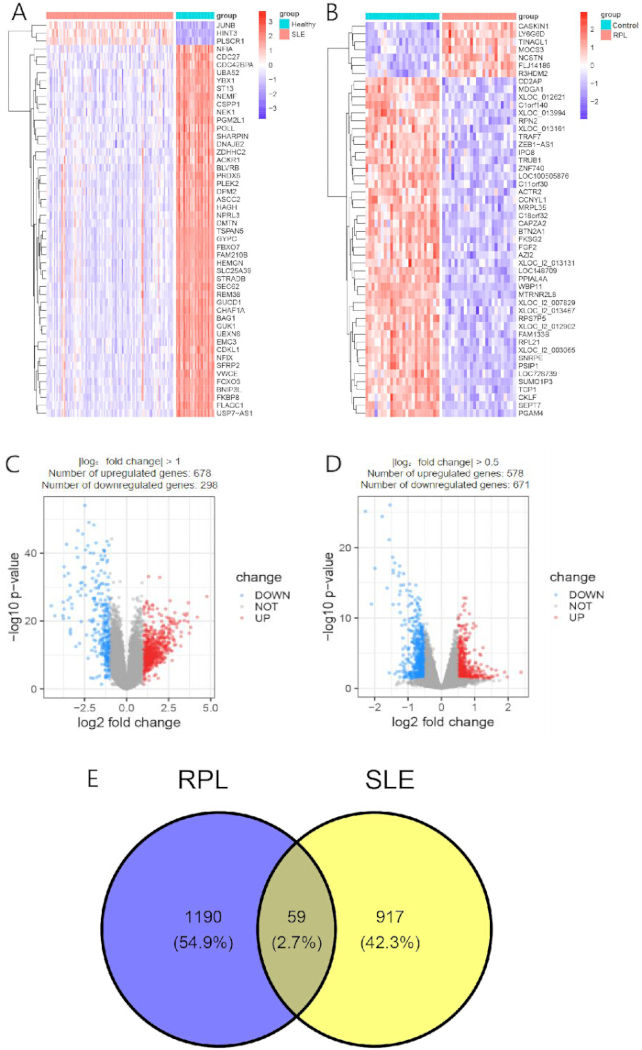
الشكل 3. الجينات ذات التعبير التفاضلي في مرض الذئبة الحمامية الجهازية وفقدان الحمل المتكرر.
(A) خريطة حرارية لأكثر 50 جينًا ذات تعبير تفاضلي (DEGs) أهمية بين المرضى المصابين بالذئبة الحمامية الجهازية (SLE) والمجموعات الضابطة السليمة في GSE61635. (B) خريطة حرارية لأكثر 50 جينًا من الـ DEGs أهمية بين المرضى المصابين بفقدان الحمل المتكرر (RPL) والمجموعات الضابطة الخصبة في GSE165004. (C) مخطط بركاني للتعبير الجيني التفاضلي في GSE61635. (D) مخطط بركاني للتعبير الجيني التفاضلي في GSE165004. (E) مخطط فين يوضح التداخل بين قوائم الـ DEG الهامة من مجموعات بيانات اكتشاف SLE وRPL. DEGs، الجينات ذات التعبير التفاضلي. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تحليل الإثراء الوظيفي للجينات المعبر عنها تفاضلياً المتقاطعة:
لإجراء تحليل لوظائف الجينات ذات التعبير التفاضلي (DEG) على المستوى الجزيئي، استُخدمت أداة DAVID عبر الإنترنت (الإصدار 2021؛ RRID:SCR_001881)32 استُخدم لإجراء تحاليل إثراء الوظائف وفقاً لنظام الوجود الجيني (GO) ومسارات موسوعة كيوتو للجينات والجينومات (KEGG). وقد تم رفع رموز الجينات البشرية الرسمية بصفتها نوع المعرّف، و Homo sapiens تم اختيارها كنوع للدراسة. وتكونت مجموعة الخلفية المخصصة من تقاطع جميع الجينات التي اجتازت مرحلة التعليق التوضيحي للمسبار ومراقبة الجودة، والتي كانت قابلة للقياس في كل من GSE61635 وGSE165004. تم تحديد الحد الأدنى لعتبة عدد الجينات بـ 2، بينما يمثل الحد الأقصى لدرجة EASE اختبار فيشر الدقيق أحادي الجانب المعدل الخاص بـ DAVID. P وتم تحديد القيمة عند 0.05. كما تم ضبط المقارنات المتعددة باستخدام إجراء بنجاميني-هوشبرج (Benjamini–Hochberg) المذكور في عمود "Benjamini" في برنامج DAVID. واعتُبرت المصطلحات الوظيفية ذات دلالة إحصائية عندما كانت درجة EASE < 0.05 والقيمة المعدلة وفقًا لمنهج Benjamini P كانت القيمة < 0.05. مخرجات DAVID الكاملة، بما في ذلك أسماء المصطلحات، وأعداد الجينات، ودرجات EASE، والقيم المعدلة وفقاً لطريقة Benjamini P تَمَّ تصدير القيم، وتعيينات الجينات المُدخلة، وتعيينات الجينات الخلفية، في ملف مفصول بعلامات جدولة. واستُخدِم موقع CNSknowall لتصور نتائج DAVID المُرشحة. وتُعرَض نتائج إثراء GO وKEGG في الشكل 4أ.
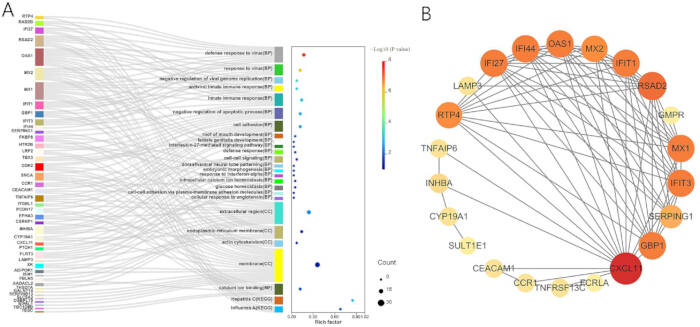
الشكل 4. تحليل الإثراء الوظيفي وشبكة التفاعل بين البروتينات للجينات المشتركة ذات التعبير التفاضلي.
(A) تحليلات الإثراء الخاصة بـ Gene Ontology (GO) وKyoto Encyclopedia of Genes and Genomes (KEGG) لـ 59 جيناً مشتركاً ذات تعبير تفاضلي (DEGs). يوضح مخطط سانكي (Sankey diagram) العلاقات بين الجينات ومصطلحات GO المثرية، بينما يلخص مخطط الفقاعات المرفق مصطلحات GO وKEGG المثرية وفقاً لعامل الإثراء (rich factor)، وعدد الجينات، والدلالة الإحصائية. (B) شبكة التفاعل بين البروتينات (PPI) التي تم بناؤها من 59 جيناً مشتركاً ذات تعبير تفاضلي (DEGs) باستخدام STRING وتم تصورها في Cytoscape. يعكس حجم العقدة ولونها درجة الاتصال بالشبكة، وتشير الحواف إلى ارتباطات البروتين-بروتين المتوقعة. BP: عملية بيولوجية؛ CC: مكون خلوي؛ MF: وظيفة جزيئية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
شبكة تفاعلات البروتين-بروتين وتحديد الجينات الأساسية:
تم رفع الجينات المعبّر عنها تفاضلياً (DEGs) المشتركة إلى برنامج STRING الإصدار 11.0 (RRID:SCR_005223)33 مع اختيار Homo sapiens ككائن حي (المعرف التصنيفي: 9606). استُخدمت شبكة STRING الكاملة، مما سمح بتحديد الارتباطات البروتينية الوظيفية والفيزيائية على حد سواء. كما تم تفعيل جميع قنوات الأدلة المتاحة، بما في ذلك الأدلة التجريبية، وقواعد البيانات المنسقة، والتعبير المشترك، والتنقيب في النصوص، ومجاورات الجينات، والاندماج الجيني، والتواجد المشترك للجينات.
تم تحديد الحد الأدنى المطلوب لدرجة التفاعل عند 0.400، وهو ما يتوافق مع مستوى الثقة المتوسطة. لم يتم إضافة أي متفاعلات إضافية من الدرجة الأولى أو الثانية؛ وبالتالي، احتوت الشبكة فقط على البروتينات التي تشفرها الجينات المعبّر عنها تفاضلياً (DEGs) المشتركة والمقدمة. عُرِضت حواف الشبكة باستخدام وضع الثقة، وصُدّرت كملف قيم مفصولة بعلامات جدولة يحتوي على البروتينات المتفاعلة ودرجات STRING المجمعة. تمثل درجات ثقة STRING مدى الثقة في وجود الارتباط بدلاً من حجم التفاعل أو قوة الارتباط.
تم استيراد ملف شبكة STRING إلى برنامج Cytoscape الإصدار 3.10.0 (RRID:SCR_003032)34. وقد تمت إزالة العقد التي تفتقر إلى أي تفاعل مع بروتين آخر مقدم قبل إجراء تحليل طوبولوجيا الشبكة35. عوملت الشبكة المتبقية كشبكة غير موجهة. تم الاحتفاظ بدرجات STRING المجمعة كسمات للحواف لأغراض التصور، بينما تم إنشاء تصنيفات cytoHubba باستخدام التعريفات الطوبولوجية غير الموزونة الافتراضية. تظهر شبكة PPI الناتجة في الشكل 4B.
تم ترتيب الجينات المحورية باستخدام cytoHubba الإصدار 0.1 (RRID:SCR_017677) عبر ست خوارزميات هي: مركزية النقرة القصوى (MCC)، ومكون الجوار الأقصى (MNC)، والمكون المتسرب للحواف (EPC)، والدرجة (Degree)، والقرب (Closeness)، والقطرية (Radiality)36. وبالنسبة لكل خوارزمية، رُتّبت الجينات بترتيب تنازلي، وتم الاحتفاظ بأفضل 10 جينات. حُدِّدت الجينات المرشحة لتكون محورية في الشبكة باستخدام التقاطع الصارم لقوائم العشرة الأوائل في الخوارزميات الست؛ وبالتالي، لم يتم الاحتفاظ بالجين كمركز للشبكة إلا إذا ظهر ضمن أفضل 10 جينات نتجت عن جميع الخوارزميات الست. صُدِّرت إجراءات الترتيب والتقاطع وأُرشِفت. وتظهر أفضل 10 جينات حددتها كل خوارزمية من خوارزميات cytoHubba في الجدول 3.
| تصنيف | مركزية الزمرة القصوى (MCC) | مكون الجوار الأقصى (MNC) | المكون المتسرب الحوافي (EPC) | درجة | التقارب | الشعاعية |
| 1 | RSAD2 | RSAD2 | RSAD2 | RSAD2 | RSAD2 | RSAD2 |
| 2 | RTP4 | RTP4 | RTP4 | RTP4 | RTP4 | RTP4 |
| 3 | IFIT3 | IFIT3 | IFIT3 | IFIT3 | IFIT3 | IFIT3 |
| 4 | IFI27 | IFI27 | IFI27 | IFI27 | IFI27 | IFI27 |
| 5 | IFI44 | IFI44 | IFI44 | IFI44 | IFI44 | IFI44 |
| 6 | GBP1 | GBP1 | GBP1 | GBP1 | GBP1 | GBP1 |
| 7 | MX1 | MX1 | MX1 | MX1 | MX1 | MX1 |
| 8 | OAS1 | OAS1 | OAS1 | OAS1 | OAS1 | OAS1 |
| 9 | IFIT1 | IFIT1 | IFIT1 | IFIT1 | IFIT1 | IFIT1 |
| 10 | CXCL11 | CXCL11 | CXCL11 | CXCL11 | CXCL11 | CXCL11 |
الجدول 3: أهم 10 جينات مركزية (hub genes) تم تحديدها بواسطة ست خوارزميات تصنيف من cytoHubba.
تم تصنيف الجينات ذات التعبير التفاضلي المشتركة باستخدام ست خوارزميات لطوبولوجيا الشبكة مُنفذة في إضافة cytoHubba الخاصة ببرنامج Cytoscape. تظهر الجينات العشرة الأولى التي صنفتها كل خوارزمية للمقارنة بين مركزية الكتلة القصوى (MCC)، ومكون الجوار الأقصى (MNC)، ومكون الحافة المتسربة (EPC)، والدرجة (Degree)، والقرب (Closeness)، والقطرية (Radiality).
انحدار LASSO لتحديد الجينات الأساسية:
أُجري انحدار LASSO اللوجستي بشكل مستقل في مجموعات بيانات الاكتشاف الخاصة بـ SLE وRPL باستخدام glmnet الإصدار 4.1-8 (RRID:SCR_015505). تألفت مصفوفة التنبؤ من قيم التعبير المعيارية للمرشحين كمراكز للشبكة، حيث مثلت الصفوف العينات ومثلت الأعمدة الجينات. تم ترميز حالة المرض بالقيمة 1 وحالة الضبط بالقيمة 0. تم تطبيق نموذج خطي معمّم ثنائي الحدين مع عقوبة LASSO بحتة باستخدام family = "binomial" و alpha = 1. كما تم توحيد المتغيرات التنبؤية داخلياً باستخدام standardize = TRUE، مع إدراج تقاطع (intercept). وأُنشئت تعيينات تقسيم عشاري (10-fold) طبقية حسب الفئة بشكل منفصل لمجموعات بيانات SLE وRPL باستخدام كود R أساسي مخصص. وضمن كل طبقة من طبقات حالة المرض، تم تبديل مؤشرات العينات عشوائياً وتوزيعها بالتساوي قدر الإمكان عبر التقسيمات العشرة باستخدام sample(rep(seq_len(10), length.out = n)). كما تم تعيين بذرة عشوائية (random seed) بقيمة 123 قبل إنشاء تعيينات التقسيم لكل مجموعة بيانات لضمان إمكانية إعادة إنتاج النتائج. ونظراً لأن كل مجموعة من حالات المرض احتوت على أكثر من 10 عينات، فقد تضمن كل تقسيم للتحقق المتقاطع كل من الحالات والمجموعات الضابطة. زُودت وسيطة foldid في دالة cv.glmnet() بمتجهات الأعداد الصحيحة الناتجة (foldid_sle و foldid_rpl)، واستُخدمت تعيينات التقسيم ذاتها لجميع قيم λ التي تم تقييمها ضمن مجموعة البيانات المقابلة.
تمت ملاءمة النماذج باستخدام family = "binomial"، و alpha = 1، و nfolds = 10، و type.measure = "deviance"، و standardize = TRUE، و intercept = TRUE، و nlambda = 100، و thresh = 1 × 10⁻7، و maxit = 100000. تم اختيار معامل الجزاء باستخدام lambda.min، والذي يُعرَّف بأنه قيمة lambda التي تنتج أدنى متوسط للانحراف الثنائي المتقاطع (cross-validated binomial deviance). كما تم تسجيل lambda.1se الأكثر تحفظاً، والذي يُعرَّف بأنه أكبر قيمة lambda تقع ضمن خطأ معياري واحد من أدنى خطأ للتحقق المتقاطع، كـ نتيجة للحساسية. طُبِّق إجراء LASSO بشكل منفصل على GSE61635 و GSE165004. وعُرِّفت الجينات ذات المعاملات غير الصفرية في كلا النموذجين الخاصين بالمرض بأنها الجينات المرشحة المشتركة المختارة بواسطة LASSO. ومن خلال إدخال حد تنظيم L1، تقوم هذه الطريقة بتقليص معاملات الجينات الأقل إفادة بفعالية إلى الصفر، وبذلك تقوم باختيار الميزات37. وتظهر ملفات المعاملات ومنحنيات التحقق المتقاطع ذات الـ 10 طيات لمجموعات بيانات اكتشاف SLE و RPL في الشكل 5.
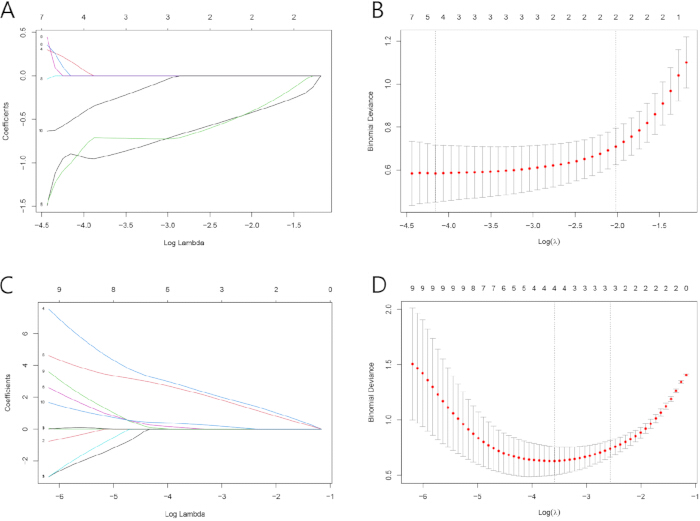
الشكل 5تحليل انحدار مشغل الاختيار والتقليص المطلق الأدنى للجينات المحورية في الشبكة.
(أ) ملفات المعاملات التي تم إنشاؤها بواسطة انحدار "لاسو" (LASSO) اللوجستي لمجموعة بيانات اكتشاف الذئبة الحمامية الجهازية (SLE) (GSE61635). (ب) منحنى التحقق المتقاطع بمقدار عشر مرات المستخدم لتحديد معامل الجزاء الأمثل (λ(ب) لنموذج الذئبة الحمامية الجهازية (SLE). (ج) ملفات المعاملات التي تم إنشاؤها بواسطة انحدار LASSO اللوجستي لمجموعة بيانات اكتشاف الإجهاض المتكرر (RPL) (GSE165004). (د) منحنى التحقق المتقاطع العشري المستخدم لتحديد معامل الجزاء الأمثل (λ) لنموذج RPL. تشير الأرقام الموجودة على طول المحور السيني العلوي إلى عدد معاملات الانحدار غير الصفرية عند كل قيمة من قيم λتشير الخطوط المتقطعة الرأسية إلى λدقيقة و λ1 ثانية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
التحقق من القيمة التشخيصية للجينات الجوهرية:
تم تقييم أنماط تعبير الجينات المرشحة التي تم اختيارها بواسطة LASSO في مجموعة بيانات SLE المستقلة GSE50772 ومجموعة بيانات RPL المستقلة GSE198700. وقد استُخدمت مجموعات البيانات الخارجية فقط بعد اكتمال عملية اختيار الجينات المرشحة في GSE61635 و GSE165004. ولم يتم إجراء أي عملية اختيار إضافية للميزات أو ملاءمة للنماذج في مجموعات بيانات التحقق. وقورنت مستويات تعبير الجينات المرشحة بين الحالات والمجموعات الضابطة باستخدام اختبار ويلكوكسون لمجموع الرتب (two-sided Wilcoxon rank-sum test). وعند اختبار أكثر من جين مرشح واحد ضمن مجموعة بيانات معينة، تم تصحيح قيم P الناتجة باستخدام إجراء بنجاميني-هوكبيرج (Benjamini–Hochberg procedure). واعتُبر الجين المرشح مكرراً خارجياً عندما اختلف تعبيره بشكل ملحوظ بين الحالات والمجموعات الضابطة بعد تصحيح الاختبارات المتعددة، وكانت اتجاهية التعبير متوافقة مع مجموعة بيانات الاكتشاف المقابلة. تظهر أنماط تعبير الجينات المرشحة في مجموعتي بيانات الاكتشاف والتحقق في الشكل 6.
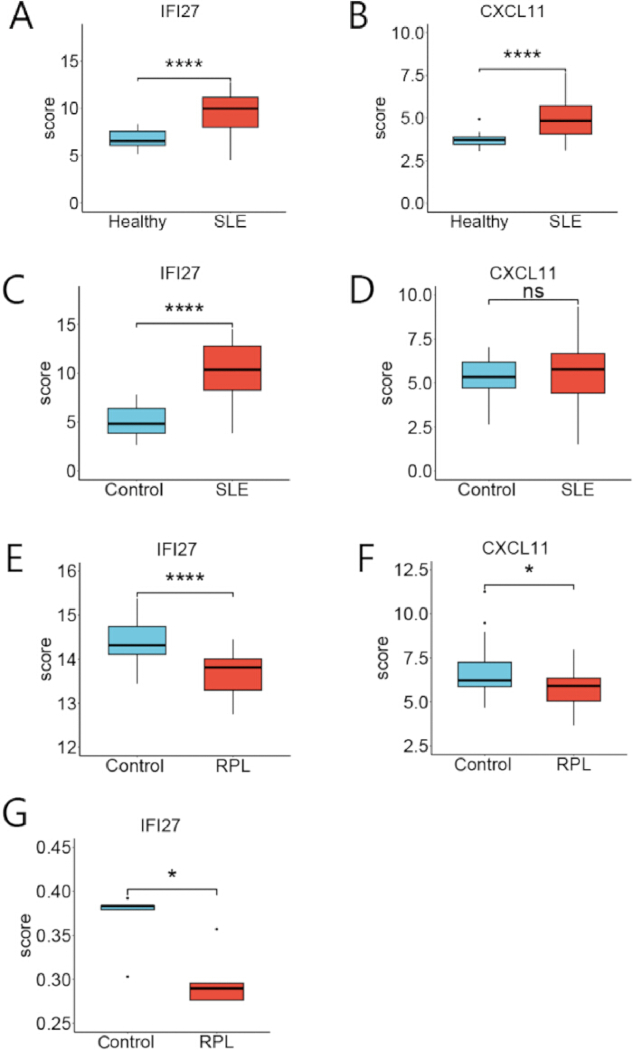
الشكل 6تعبير IFI27 وCXCL11 في مجموعات بيانات الاكتشاف والتحقق.
(أ، ب) تعبير IFI27 وCXCL11، على التوالي، في مجموعة بيانات اكتشاف الذئبة الحمامية الجهازية (SLE) (GSE61635). (ج، د) تعبير IFI27 وCXCL11، على التوالي، في مجموعة بيانات التحقق المستقلة من الذئبة الحمامية الجهازية (SLE) (GSE50772). (هـ، و) تعبير IFI27 وCXCL11، على التوالي، في مجموعة بيانات اكتشاف فقدان الحمل المتكرر (RPL) (GSE165004). (ز) تعبير IFI27 في مجموعة بيانات التحقق المستقلة من فقدان الحمل المتكرر (RPL) (GSE198700). تمت مقارنة التعبير الجيني بين المجموعات باستخدام اختبار ويلكوكسون لمجموع الرتب ثنائي الجانب (two-sided Wilcoxon rank-sum test). P تم تعديل القيم باستخدام طريقة بنجاميني-هوكبرج (Benjamini–Hochberg) عند اختبار جينات مرشحة متعددة ضمن مجموعة البيانات نفسها. P < 0.05; **** P < 0.0001؛ ns، غير دال إحصائياً. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
أُجريت تحليلات خصائص تشغيل المستقبل (ROC) باستخدام pROC الإصدار 1.18.5 (RRID:SCR_024286)38. وتم إنشاء منحنيات ROC منفصلة لكل جين مرشح في كل مجموعة بيانات استكشافية. كما تم حساب المساحة تحت منحنى ROC (AUC) وفاصل الثقة ثنائي الجانب بنسبة 95% باستخدام طريقة DeLong. وحُددت نقطة القطع التشخيصية الاستكشافية باستخدام أقصى مؤشر Youden. وحُسبت فواصل الثقة لنقطة القطع والحساسية والنوعية باستخدام 2,000 تكرار bootstrap طبقي مع ضبط البذرة العشوائية على 123. استُخدمت AUC كمقياس للتمييز مستقل عن العتبة39. وبما أن مجموعات البيانات كانت استرجاعية وأُنتجت باستخدام أنسجة ومنصات وإجراءات معايرة مختلفة، فقد حُسبت نقاط القطع المشتقة من مؤشر Youden بشكل منفصل داخل كل مجموعة بيانات، وعُوملت كعتبات استكشافية خاصة بكل مجموعة بيانات. ولم تُعتبر نقاط قطع سريرية معيارية ولم تُنقل مباشرة بين المنصات. وتمثل نتائج ROC الخارجية التحقق النسخي وليس التحقق السريري الاستشرافي. ويدعم pROC فواصل ثقة DeLong لقيم AUC وتحسين مؤشر Youden من خلال coords()، بينما يمكن تقدير فواصل الثقة لإحداثيات ROC باستخدام إعادة أخذ العينات بطريقة bootstrap الطبقية. تظهر منحنيات ROC وملخصات تمييز الجينات المرشحة في مجموعات بيانات الاستكشاف لمرض SLE و RPL في الشكل 7.
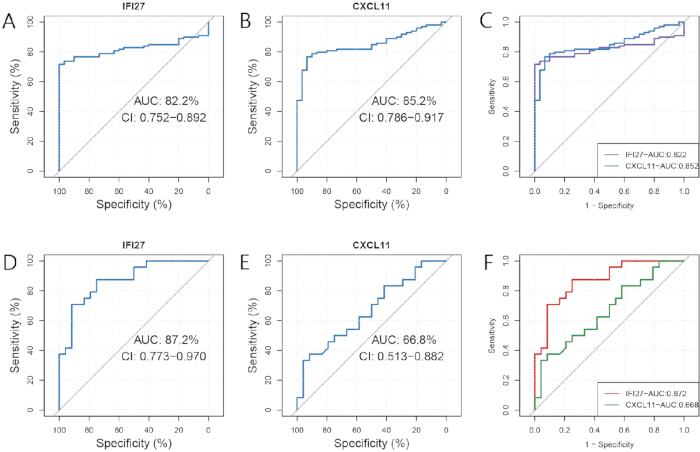
الشكل 7. تحليل خصائص تشغيل المستقبل للجينات المرشحة.
(A) منحنى خصائص تشغيل المستقبل (ROC) لـ IFI27 في مجموعة بيانات اكتشاف الذئبة الحمامية الجهازية (SLE). (B) منحنى ROC لـ CXCL11 في مجموعة بيانات اكتشاف SLE. (C) ملخص للأداء التشخيصي لـ IFI27 و CXCL11 في مجموعة بيانات اكتشاف SLE. (D) منحنى ROC لـ IFI27 في مجموعة بيانات اكتشاف فقدان الحمل المتكرر (RPL). (E) منحنى ROC لـ CXCL11 في مجموعة بيانات اكتشاف RPL. (F) ملخص للأداء التشخيصي لـ IFI27 و CXCL11 في مجموعة بيانات اكتشاف RPL. يتم عرض قيم المساحة تحت المنحنى (AUC) مع فواصل ثقة (CIs) بنسبة 95%. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تسلل الخلايا المناعية باستخدام ssGSEA:
نظرًا لأدوار خلل تنظيم الخلايا المناعية في إمراضية SLE وRPL40,41، تم استنتاج إثراء الخلايا المناعية حاسوبيًا في مجموعات بيانات الاكتشاف GSE61635 وGSE165004. وقد أُجري التحليل بشكل منفصل داخل كل مجموعة بيانات، ولم يتم دمج مجموعات البيانات. تألفت مجموعة بصمات الجينات للخلايا المناعية من مجموعات الجينات الواسمة لـ 28 مجتمعًا من الخلايا المناعية التي وصفها Charoentong et al.42. تم تحويل جدول بصمة الجينات التكميلي الأصلي إلى قائمة مجموعات جينات مسمى باستخدام رموز الجينات البشرية الرسمية. كما تم إزالة الرموز المكررة داخل كل مجموعة جينية. واستُبعدت الجينات الغائبة عن مصفوفة التعبير المقابلة، كما استُبعدت مجموعات الجينات التي تحتوي على أقل من خمسة جينات متطابقة بعد تعيين المعرفات من مجموعة البيانات تلك. أُجري تحليل إثراء مجموعة الجينات للعينة الواحدة (ssGSEA) باستخدام GSVA الإصدار 1.52.3 (RRID:SCR_021058) وGSEABase الإصدار 1.66.0. في إصدار GSVA 1.52.3، يلزم وجود كائن معاملات محدد للطريقة. وقد استُخدمت المعاملات التالية: minSize = 5, maxSize = 500, alpha = 0.25, normalize = TRUE, و checkNA = "yes.”
تم ضبط معامل alpha على 0.25، مع تفعيل التطبيع النهائي لدرجة ssGSEA. وقُصرت مجموعات الجينات على 5–500 جين بعد مطابقتها مع مصفوفة التعبير. استُخدم التنفيذ أحادي الخيط لضمان اتساق الحسابات عبر الأنظمة المختلفة. لم يُستخدم معامل kcdf لأنه ليس من معاملات إجراء ()ssgseaParam في إصدار GSVA 1.52.3. تنتج طريقة ssGSEA درجات إثراء لمجموعات الجينات على مستوى العينات النسبية، بدلاً من أعداد الخلايا المناعية المقاسة تجريبياً أو كسور الخلايا المطلقة43. يتطلب سير عمل GSVA 1.52.3 كائناً للمعاملات خاصاً بالطريقة، وتشمل معاملات ssGSEA كلاً من alpha، وتطبيع الدرجات، وحدود حجم مجموعة الجينات.
لكل بصمة خلية مناعية، تمت مقارنة درجات ssGSEA بين مجموعات المرض والمجموعات الضابطة باستخدام اختبار ويلكوكسون لمجموع الرتب ثنائي الجانب. وقد تم تعديل قيم P لمقارنات أنواع الخلايا الثمانية والعشرين بشكل منفصل داخل كل مجموعة بيانات باستخدام طريقة بنجاميني-هوشبرغ. واعتُبرت بصمات الخلايا المناعية التي كانت قيمة P المعدلة لها < 0.05 مثرية بشكل تفاضلي.
تَمّ حساب ارتباطات رتب سبيرمان (Spearman rank correlations) بين تعبير الجينات المرشحة ودرجة ssGSEA لكل بصمة من بصمات الخلايا المناعية ضمن كل مجموعة بيانات. وجرت تسوية قيم P للارتباط باستخدام طريقة بنجاميني-هوشبرغ (Benjamini–Hochberg) عبر جميع تركيبات الجينات المرشحة والخلايا المناعية داخل تلك مجموعة البيانات. واعتُبرت الارتباطات ذات دلالة إحصائية عندما تكون قيمة P المُسواة < 0.05. كما تَمّ تمثيل مصفوفات الارتباط بصرياً باستخدام ggcorrplot الإصدار 0.1.4.1، وأُنشئت مخططات مقارنة المجموعات باستخدام ggplot2 الإصدار 3.5.1.
تم استخدام درجات ssGSEA الخام والمعيرة في جميع الاختبارات الإحصائية. واستُخدمت الخرائط الحرارية والتصورات المكدسة للعرض الوصفي فقط. ولم يتم وصف الدرجات على أنها نسب مباشرة للخلايا المناعية، وفُسِّرت الارتباطات الملحوظة على أنها ارتباطات حسابية وليست تفاعلات خلية-جين مثبتة تجريبياً. وتظهر ملفات إثراء توقيع الخلايا المناعية، والمقارنات بين المجموعات، والارتباطات مع تعبير الجينات المرشحة في الشكل 8.
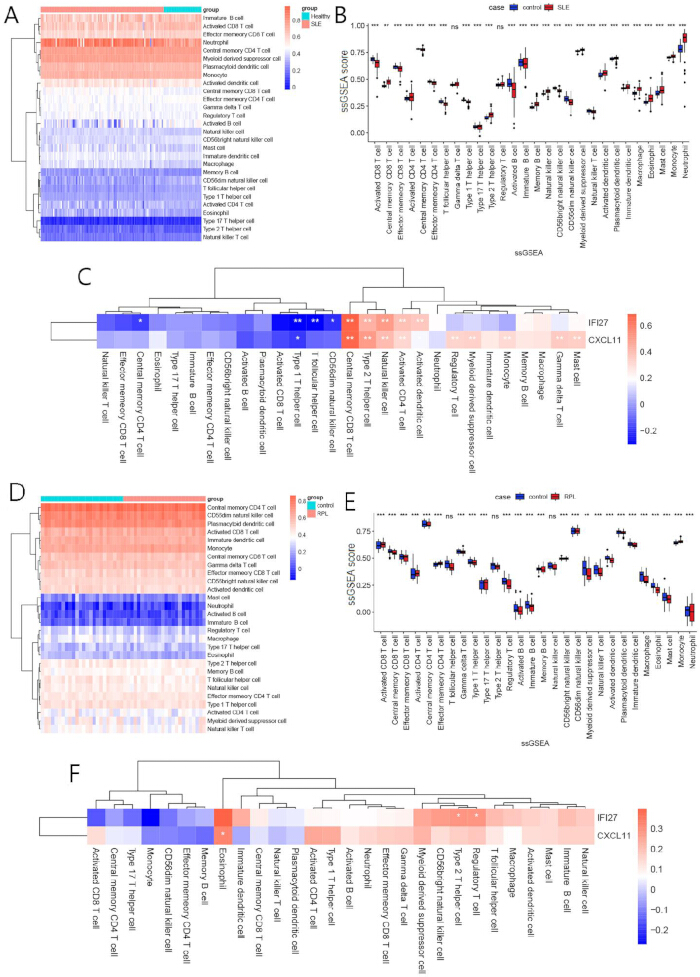
الشكل 8إثراء البصمة الخلوية المناعية والارتباطات مع الجينات المرشحة المشتركة في مرض الذئبة الحمامية الجهازية وفقدان الحمل المتكرر.
(أ) خريطة حرارية للتجميع الهرمي لدرجات تحليل إثراء مجموعة الجينات للعينة الواحدة (ssGSEA) لـ 28 بصمة من الخلايا المناعية في مجموعة بيانات اكتشاف الذئبة الحمامية الجهازية (SLE). (ب) مقارنة درجات ssGSEA لبصمات الخلايا المناعية بين المرضى المصابين بالذئبة الحمامية الجهازية (SLE) والمجموعات الضابطة السليمة. (ج) خريطة حرارية لارتباط سبيرمان توضح الارتباطات بين تعبير IFI27 وCXCL11 ودرجات ssGSEA لـ 28 بصمة من الخلايا المناعية في مجموعة بيانات اكتشاف الذئبة الحمامية الجهازية (SLE). (د) خريطة حرارية للتجميع الهرمي لدرجات ssGSEA لـ 28 بصمة من الخلايا المناعية في مجموعة بيانات اكتشاف الإجهاض المتكرر (RPL). (هـ) مقارنة درجات ssGSEA لبصمات الخلايا المناعية بين المرضى المصابين بالإجهاض المتكرر (RPL) والمجموعات الضابطة الخصبة. (و) خريطة حرارية لارتباط سبيرمان توضح الارتباطات بين تعبير IFI27 وCXCL11 ودرجات ssGSEA لـ 28 بصمة من الخلايا المناعية في مجموعة بيانات اكتشاف الإجهاض المتكرر (RPL). حُسبت الارتباطات باستخدام معامل ارتباط الرتب لسبيرمان، و P تَمّ تعديل القيم باستخدام طريقة بنجاميني-هوخبيرغ (Benjamini–Hochberg). P < 0.05; ** P < 0.01; *** P < 0.001؛ ns، غير دال إحصائياً. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
النتائج
تحليل الانحدار المضلل (MR)
بعد اختيار الأداة وتوحيد البيانات، تم الاحتفاظ بـ 16 متغيرًا نوكليوتيديًا مفرطًا (SNP) لتحليل الانحدار المضلل الطردي، حيث تم التعامل مع الذئبة الحمامية الجهازية (SLE) كعامل تعرض وعدد حالات الإجهاض التلقائي كناتج. ترد المعلومات التفصيلية حول المتغيرات الصورية في الجدول التكميلي 1. كانت جميع القيم الاحصائية F لكل SNP أعلى من 10، مما يشير إلى احتمال ضعيف لانحياز الأداة الضعيفة. كما تم فحص كل SNP باستخدام برنامج PhenoScanner V2، ولم يتم تحديد أي SNP مرتبط بـ aPL. لم يكشف تحليل MR-PRESSO عن وجود قيم شاذة. أظهر اختبار كوكرين Q عدم وجود تباين كبير بين التقديرات الخاصة بكل SNP (Q = 16.12، P = 0.31)؛ لذلك تم تطبيق نموذج IVW ذي التأثيرات الثابتة. لم يُشر اختبار تقاطع MR-Egger إلى وجود تعدد تأثيرات أفقي اتجاهي (P = 0.69). أظهر تحليل IVW ارتباطًا موجبًا ذا دلالة إحصائية ولكن بدرجة متواضعة كميًا بين الذئبة الحمامية الجهازية المتنبأ بها وراثيًا وعدد حالات الإجهاض التلقائي (نسبة الأرجحية [OR] = 1.01، فاصل الثقة 95% [CI] = 1.00–1.02، P < 0.01؛ الشكل 2A). كانت تقديرات التأثير الناتجة عن انحدار MR-Egger (OR = 1.01، 95% CI = 1.00–1.03، P = 0.16)، وطريقة الوسيط المرجّح (OR = 1.01، 95% CI = 1.00–1.02، P = 0.17)، وطريقة النمط المرجّح (OR = 1.01، 95% CI = 0.99–1.03، P = 0.42) متسقة اتجاهيًا مع تقدير IVW، على الرغم من أنها لم تصل بشكل فردي إلى دلالة إحصائية. أظهر تحليل حذف واحد في كل مرة أن استبعاد أي SNP واحد لم يُعدّل التقدير التجميعي بشكل جوهري، كما أن منحنى المخروط المتماثل تقريبًا لم يُظهر دليلًا بصريًا على أن النتيجة ناتجة عن تعدد تأثيرات أفقي اتجاهي بارز. تُعرض مخطط التبعثر المقابل، ومخطط الغابة الخاص بكل SNP، وتحليل حذف واحد في كل مرة، ومنحنى المخروط في الأشكال التكميلية 1–4.
في تحليل الانحدار العكسي، تم الاحتفاظ بـ 16 متغيرًا منقوطًا واحدًا (SNP) بعد اختيار الأداة، وكانت جميعها ذات إحصائية F أكبر من 10 (الجدول التكميلي 2). ولم يُظهر تحليل MR-PRESSO وجود أي قيم شاذة. وأظهر اختبار كوكرين Q عدم وجود تباين معنوي (Q = 13.41، P = 0.50)، كما لم يُقدِّم اختبار تقاطع MR-Egger أدلة على وجود تعدد أشكال أفقي اتجاهي (P = 0.41). ولم يُؤيد التقدير باستخدام طريقة المجموعات المرجحة داخليًا (IVW) وجود ارتباط بين عدد حالات الإجهاض التلقائي المتوقع وراثيًا وخطر الإصابة بذئبة حمامية منتشرة (SLE) (نسبة الأرجحية = 0.93، الفاصل الثقة 95% = 0.21–4.23، P = 0.93؛ الشكل 2B). باختصار، تدعم نتائج الانحدار المتعدد ارتباطًا معتدلًا في الاتجاه الأمامي، من الذئبة الحمامية المنتشرة المتوقعة وراثيًا إلى عدد حالات الإجهاض التلقائي، في حين لم يُؤيد التحليل العكسي وجود ارتباط من عدد حالات الإجهاض التلقائي المتوقع وراثيًا إلى خطر الإصابة بالذئبة الحمامية المنتشرة.
التحليلات الحيوية المعلوماتية
تحليل التعبير التفاضلي:
كشف تحليل التعبير التفاضلي لمجموعة البيانات GSE61635 عن وجود 976 جيناً من المُعبّر عنها بشكل تفاضلي (DEGs) بين مجموعتي مرضى الذئبة الحمامية الجهازية (SLE) والضوابط الأصحاء، تضمّنت 678 جيناً مُرتفعاً في التعبير و298 جيناً منخفضاً في التعبير (الشكل 3C). كما كشف تحليل مجموعة البيانات GSE165004 عن وجود 1,249 جيناً من المُعبّر عنها بشكل تفاضلي بين مجموعتي مرضى الذئبة الحمراء المقاومة للعلاج (RPL) والضوابط، تضمّنت 578 جيناً مُرتفعاً في التعبير و671 جيناً منخفضاً في التعبير (الشكل 3D). وتُعرض خرائط الحرارة التي تُبيّن أكثر 50 جيناً تفاضلياً دلالةً إحصائية في مجموعتي البيانات الاكتشافية في الشكل 3A والشكل 3B. وبالإضافة إلى ذلك، تم تحديد 59 جيناً من المُعبّر عنها بشكل تفاضلي المشترك بين مجموعتي البيانات (الشكل 3E). وقد شكّلت هذه الجينات المشتركة مجموعة الجينات التي استُخدمت في التحليلات اللاحقة للإثراء الوظيفي والتحليلات الشبكية.
تحليل إثراء الوظائف للجينات المُختلَفة التعبير المشتركة:
خضع 59 جينًا مُختلَفًا في التعبير والمشتركًا لتحليلات إثراء المسارات البيولوجية (GO) وKEGG باستخدام أداة DAVID. وفي فئة العمليات البيولوجية، أُثرِيت الجينات المشتركة في الاستجابة المناعية ضد الفيروسات، والاستجابة للفيروسات، والتنظيم السلبي لتضاعف الجينوم الفيروسي، والاستجابة المناعية الفطرية المضادة للفيروسات، والتنظيم السلبي لعملية موت الخلايا المبرمج (الاستماتة)، والالتصاق الخلوي. وشملت مصطلحات المكونات الخلوية المُثرَة المنطقة خارج الخلية، وغشاء الشبكة الإندوبلازمية، والهيكل الخلوي للآكتين، والغشاء الخلوي. وتم تحديد ارتباط أيونات الكالسيوم ضمن مصطلحات الوظيفة الجزيئية المُثرَة. وأظهر تحليل KEGG إثراءً في مسارات مرتبطة بالتهاب الكبد الوبائي جي (C) والإنفلونزا أ (الشكل 4A). وتشير هذه النتائج إلى أن الجينات المُختلَفة في التعبير والمشتركة كانت مرتبطة بشكل رئيسي بالعمليات البيولوجية المضادة للفيروسات والمناعة، مما يوفر سياقًا وظيفيًا للجينات المشتركة بين مجموعتي بيانات اكتشاف الذئبة الحمامية الجهازية (SLE) وفشل الإنجاب التكراري (RPL).
الشبكة البروتينية البروتينية وتحديد الجينات الأساسية
تم رفع 59 جينًا من الجينات منخفضة التعبير المشتركة إلى قاعدة بيانات STRING لبناء شبكة تفاعل بروتيني-بروتيني باستخدام أقل درجة ثقة في التفاعل تبلغ 0.400. واحتوت الشبكة الناتجة على 59 عقدة و80 حافة. ثم تم استيراد الشبكة إلى برنامج Cytoscape الإصدار 3.10.0 لتوضيحها بصريًا، وتمت إزالة العقد المعزولة قبل إجراء التحليل الطوبولوجي (الشكل 4B). تم إجراء تصنيف الجينات الأساسية باستخدام البرنامج المساعد cytoHubba. وطُبقت ستة خوارزميات هي: مركزية العنقود الأقصى (MCC)، المكون الأقصى للجوار (MNC)، المكون الناتج عن انتقال الحافة (EPC)، الدرجة، القرب، والشعاعية. وقد تم تحديد نفس 10 جينات ضمن الجينات الأعلى ترتيبًا وفقًا لجميع الخوارزميات الست: RSAD2، RTP4، IFIT3، IFI27، IFI44، GBP1، MX1، OAS1، IFIT1، وCXCL11 (الجدول 3). وبالتالي تم الاحتفاظ بهذه الجينات كمرشحات للجينات الأساسية في الشبكة لتحليل الانحدار الخطي ذي اختيار أقل المطلقة (LASSO) اللاحق.
حدد انحدار لاسو IFI27 و CXCL11 كجينين مرشحين مشتركين
خضعَ العشرة جينات الأساسية المرشحة لتحليل انحدار لاسو (LASSO) في مجموعتي اكتشاف الذئبة الحمامية الجهازية (SLE) وفرط التخثر المتكرر (RPL). في مجموعة الذئبة الحمامية الجهازية (SLE)، حافظ أربعة جينات على معاملات غير صفرية عند قيمة لامبدا المختارة: IFIT3 وIFI27 وIFI44 وCXCL11، بمعاملات قيمتها 2.575 و0.057 و2.359 و0.307 على التوالي (الشكل 5A،B). وفي مجموعة فرط التخثر المتكرر (RPL)، حافظ أربعة جينات على معاملات غير صفرية: IFI27 وGBP1 وOAS1 وCXCL11، بمعاملات قيمتها -0.897 و0.167 و-1.007 و-0.519 على التوالي (الشكل 5C،D). وقد أظهرت مقارنة الجينات التي اختارها النموذجان المخصصان لكل مرض أن IFI27 وCXCL11 هما الجينان المرشحان المشتركان المحدَّدان بواسطة لاسو. ثم تم تقييم هذين الجينين لاحقًا في مجموعتي الاكتشاف والتحقق الخارجي.
التحقق الخارجي من التعبير عن IFI27 و CXCL11
تم تقييم أنماط التعبير للجينين المرشحين باستخدام مجموعتي البيانات المستقلتين للتحقق GSE50772 و GSE198700 المستمدة من قاعدة بيانات GEO. في مجموعة GSE61635، كان التعبير عن كلا الجينين IFI27 و CXCL11 مرتفعًا بشكل كبير في مجموعة الذئبة الحمامية الجهازية (SLE) مقارنةً بالضوابط السليمة (الشكل 6A،B). وفي مجموعة التحقق المستقلة لمرض الذئبة الحمامية الجهازية (GSE50772)، ظل التعبير عن IFI27 مرتفعًا بشكل كبير (الشكل 6C)، في حين لم يُلاحظ فرق ذو دلالة إحصائية في التعبير عن CXCL11 بين المجموعات (الشكل 6D). وفي مجموعة اكتشاف الإجهاض المتكرر للحمل (RPL) (GSE165004)، كان التعبير عن كلا الجينين IFI27 و CXCL11 منخفضًا بشكل كبير في مجموعة RPL مقارنةً بالضوابط (الشكل 6E،F). وفي مجموعة التحقق المستقلة لمرض RPL (GSE198700)، ظل التعبير عن IFI27 منخفضًا بشكل كبير في مجموعة RPL (الشكل 6G)، في حين لم يتم اكتشاف CXCL11. بشكل عام، أظهر IFI27 تعبيرًا تفاضليًا متسقًا عبر مجموعات اكتشاف وتحقق كل من SLE وRPL. على النقيض من ذلك، لم يُكرر التعبير عن CXCL11 بشكل متسق في مجموعات التحقق الخارجية. وبالتالي، تم إعطاء الأولوية لـ IFI27 كمؤشر حيوي مرشح مشترك للتحليلات اللاحقة.
التقييم الاستكشافي للتمييز التشخيصي
أُجري تحليل المنحنى المميز للأداء (ROC) لتقييم قدرة التعبير عن IFI27 و CXCL11 على التمييز بين عينات المرضى والضوابط في مجموعات البيانات النسخيّة الرجعية المُحلَّلة. بالنسبة للذئبة الحمامية الجهازية (SLE)، أعطى IFI27 مساحة تحت منحنى ROC (AUC) قدرها 0.822 (95% فاصل ثقة = 0.752–0.892؛ الشكل 7A)، في حين أعطى CXCL11 مساحة AUC قدرها 0.852 (95% فاصل ثقة = 0.786–0.917؛ الشكل 7B). ويُظهر الشكل 7C مقارنة بين منحنيات ROC للجينين المرشحين في مجموعة بيانات الذئبة الحمامية الجهازية. وبالنسبة لـ RPL، أعطى IFI27 مساحة AUC قدرها 0.872 (95% فاصل ثقة = 0.773–0.970؛ الشكل 7D)، في حين أعطى CXCL11 مساحة AUC قدرها 0.668 (95% فاصل ثقة = 0.513–0.882؛ الشكل 7E). ويُظهر الشكل 7F مقارنة بين منحنيات ROC للجينين المرشحين في مجموعة بيانات RPL. وقد أظهر IFI27 قيم AUC تزيد عن 0.80 في مجموعتي البيانات المرضيتين، وبيّن صلاحية خارجية أكثر اتساقاً مقارنةً بـ CXCL11 عبر مجموعات البيانات التعبيرية. وتدعم هذه النتائج اعتبار IFI27 جينًا مرشحًا كعلامة حيوية يستدعي تقييمه بشكل إضافي. ومع ذلك، نظرًا لأن تحليلات ROC أُجريت باستخدام مجموعات بيانات نسخية عامة رجعية، فيجب تفسير النتائج باعتبارها دليلاً استكشافيًا على التمييز النسخي، وليس تحققًا تشخيصيًا سريريًا مستقبليًا.
التقييم الحاسوبي لاندماج المناعة
تم إجراء تحليل ssGSEA لتقييم تضخيم 28 من البصمات الخلوية المناعية في مجموعتي البيانات الاكتشافية GSE61635 وGSE165004. تُظهر الخرائط الحرارية لتضخيم الخلايا المناعية في مجموعتي بيانات الذئبة الحمامية الجهازية (SLE) وRPL في الشكل 8A،D على التوالي، في حين تُعرض المقارنات المقابلة للمجموعات من حيث درجات ssGSEA في الشكل 8B،E. في مجموعة بيانات الذئبة الحمامية الجهازية (SLE)، اختلفت بصمات متعددة للخلايا المناعية بشكل كبير بين مرضى الذئبة الحمامية الجهازية والضوابط الأصحاء، بما في ذلك تلك التي تمثل الخلايا التائية CD8+، والخلايا التائية CD4+، والخلايا البائية، والخلايا القاعدية، والخلايا التائية المساعدة من النوع 1 (Th1)، والخلايا التائية المساعدة من النوع 2 (Th2)، والخلايا التائية المساعدة من النوع 17 (Th17)، والخلايا القاتلة الطبيعية، والبلاعم، والحمضات، وخلايا الماست، والوحيدات، والعدلات (الشكل 8B). في مجموعة بيانات RPL، كانت درجات ssGSEA للخلايا التائية CD8+ النشطة، والخلايا التائية CD4+ النشطة، والخلايا التائية CD4+ الذاكرة الفعالة، والخلايا Th17، والوحيدات أعلى في مجموعة RPL مقارنةً بمجموعة الضبط. على النقيض من ذلك، كانت درجات ssGSEA للخلايا التائية التنظيمية (Treg) والبلاعم أقل في مجموعة RPL مقارنةً بمجموعة الضبط (الشكل 8E). أظهر تحليل الارتباط أنه في مجموعة بيانات الذئبة الحمامية الجهازية (SLE)، كان التعبير عن IFI27 وCXCL11 مرتبطًا إيجابيًا بدرجات ssGSEA للخلايا التائية CD4+ النشطة، والخلايا القاتلة الطبيعية، والخلايا Th2، والخلايا التائية CD8+ الذاكرة المركزية، ومرتبطًا سلبًا بدرجة ssGSEA للخلايا Th1 (الشكل 8C). في مجموعة بيانات RPL، كان التعبير عن IFI27 مرتبطًا إيجابيًا بدرجات ssGSEA للخلايا Treg والخلايا Th2، في حين كان التعبير عن CXCL11 مرتبطًا إيجابيًا بدرجة ssGSEA للحمضات (الشكل 8F).
توفر البيانات:
لم يتم إنشاء أي بيانات أولية جديدة من المشاركين البشريين في هذه الدراسة. استندت جميع التحليلات بشكل حصري إلى إحصائيات التلخيص من دراسات الارتباط على نطاق الجينوم (GWAS) والمجموعات البيانات النسخيّة المتاحة للعامة. تم الحصول على إحصائيات التلخيص الخاصة بدراسة الارتباط على نطاق الجينوم للذئبة الحمراء من FinnGen الإصدار 11 (الرقم التسلسلي: finngen_R11_L12_LUPUS). وتم الحصول على إحصائيات التلخيص الخاصة بعدد حالات الإجهاض التلقائي من مصدر IEU OpenGWAS (الرقم التسلسلي: ukb-b-419)، والذي يستند إلى بيانات البنك الحيوي في المملكة المتحدة (UK Biobank). وتم الحصول على المجموعات البيانات النسخيّة من مركز المعلومات الوطني للتقانة الحيوية لاستبيان التعبير الجيني (GEO) تحت الأرقام التسلسلية GSE61635 وGSE165004 وGSE50772 وGSE198700. ويمكن الوصول إلى المجموعات البيانات المتاحة للعامة من خلال المستودعات التالية:
— إصدار فينجين 11: https://r11.finngen.fi/
— قاعدة بيانات IEU OpenGWAS: https://gwas.mrcieu.ac.uk/
— مستودع التعبير الجيني الشامل (GEO): https://www.ncbi.nlm.nih.gov/geo/
تتضمن المقالة والمواد التكميلية البيانات المُعالجة التي تدعم نتائج هذه الدراسة. لم يتم الوصول إلى بيانات المشاركين على مستوى الفرد أو البيانات التعريفية الشخصية، ولا تم الاحتفاظ بها. تم تنفيذ سير العمل التحليلي باستخدام برامج وحزم متاحة للعامة كما هو موضح في البروتوكول.
الملف التكميلي 1. قائمة التحقق المكتملة من تقرير STROBE-MR.
قائمة التحقق المكتملة من تعزيز الإبلاغ عن الدراسات الرصدية في علم الأوبئة باستخدام العشوائية المندلية (STROBE-MR)، والتي توضح مكان تناول كل بند من بنود الإبلاغ الموصى بها في المخطوطة. يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 1. مخطط التبعثر لتحليل العشوائية المندلية الأمامية.
مخطط تبعثر يوضح الارتباطات بين التأثيرات الوراثية للبوليمرات المفردة للنوكليوتيدات (SNPs) كأداة على الذئبة الحمامية الجهازية (SLE) وعدد حالات الإجهاض التلقائي. يمثل كل نقطة بوليمرًا مفردًا للنوكليوتيدات (SNP)، حيث تشير أشرطة الخطأ الأفقية والعمودية إلى أخطاء معيارية لتقديرات تأثير البوليمرات المفردة للنوكليوتيدات (SNPs). وتناظر خطوط الانحدار طرق العشوائية المندلية الموزونة بالانعكاس التربيعي، وMR-Egger، والوسيط الموزون، والنمط الموزون. يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 2. تقديرات السببية الخاصة بالبوليمرات النووية المفردة من تحليل العشوائية المندلية الأمامية.
مخطط غابة يوضح تقدير التأثير السببي لكل بوليمورف نووي مفرد أداة (SNP) على الارتباط بين الذئبة الحمامية الجهازية (SLE) وعدد حالات الإجهاض التلقائي. تمثل النقاط السوداء تقديرات التأثير الخاصة بكل بوليمورف نووي مفرد مع فترات ثقة 95%. وتمثل النقاط الحمراء تقديرات التأثير السببي الشامل التي تم الحصول عليها باستخدام طريقة الوزن المعكوس للتباين وطريقة MR-Egger. تشير الخطوط المنقطة العمودية إلى التأثير الصفري. يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 3. تحليل الحساسية بنظام ترك واحد فقط من تحليل العشوائية المندلية الطردي.
مخطط الغابة يوضح نتائج تحليل الحساسية بنظام ترك واحد فقط لتقييم الارتباط بين الذئبة الحمامية الجهازية (SLE) وعدد حالات الإجهاض التلقائي. يمثل كل نقطة سوداء تقدير التأثير السببي المرجح بالانحراف العكسي الكلي بعد استبعاد تسلسلي لواحد من البوليمرات النووية المفردة الأدواتية (SNP)، مع إشارات الخطوط الأفقية إلى فترات الثقة 95% المقابلة. تمثل النقطة الحمراء التقدير الكلي المرجح بالانحراف العكسي الذي تم الحصول عليه باستخدام جميع البوليمرات النووية المفردة الأدواتية. تشير الخطوط المنقطة العمودية إلى التأثير الصفري. يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 4. رسمة المخروط لتحليل العشوائية المندلية الطردي.
رسمة مخروطية تُظهر توزيع تقديرات التأثير السببي الخاصة بكل متغير nucleotide أحادي (SNP) بالنسبة للارتباط بين الذئبة الحمامية الجهازية (SLE) وعدد حالات الإجهاض التلقائي. يمثل كل نقطة متغيرًا أحادي النوكليوتيد (SNP) أداة. تشير الخطوط العمودية إلى تقديرات التأثير السببي الكلية التي تم الحصول عليها باستخدام طريقة الوزن المعكوس للتباين وطريقة MR-Egger. يمثل المحور الصادي معكوس الخطأ المعياري (1/SE). يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 1. البولي مورفيزمات المفردة المختارة للتحليل العشوائي لميندل الأمامي.
يُدرج الجدول البولي مورفيزمات المفردة (SNPs) المستخدمة في التحليل العشوائي لميندل الأمامي للذئبة الحمامية الجهازية وعدد حالات الإجهاض التلقائي، بما في ذلك الجين المُعلَّم الأقرب، الكروموسوم، الموضع الجيني، الأليل المؤثر، تردد الأليل المؤثر، حجم التأثير (بيتا)، الخطأ المعياري (SE)، القيمة الاحتمالية P، والإحصائية F. تستند المواقع الكروموسومية إلى تجميع الجينوم المصدر المستخدم في دراسة الارتباط على مستوى الجينوم. وتم حساب الإحصائية F كالتالي: Beta2/SE2. يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 2. البولي مورفيزمات المفردة للنوكليوتيدات المختارة للتحليل العكسي للعشوائية المندلية.
يُدرج الجدول البولي مورفيزمات المفردة للنوكليوتيدات (SNPs) المستخدمة في التحليل العكسي للعشوائية المندلية، حيث يُعد عدد حالات الإجهاض التلقائي هو العامل المعرض له، وذئبة حمامية منتشرة هو الناتج، ويشمل الجدول أقرب جين مُعلَّن، والكروموسوم، والموقع الجينومي، والأليل المؤثر، وتكرار الأليل المؤثر، وحجم التأثير (بيتا)، والخطأ المعياري (SE)، والقيمة الاحتمالية (P)، والإحصائية F. تستند المواقع الكروموسومية إلى تجميع الجينوم المصدر المستخدم في دراسة الارتباط على نطاق الجينوم. وتم حساب إحصائية F كالتالي: Beta2/SE2. يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
من خلال تحليل المندلية العشوائية (MR) ثنائي الاتجاه مقترناً بتحليلات المعلوماتية الحيوية متعددة الأبعاد، حددت هذه الدراسة علاقة سببية إيجابية بين الذئبة الحمامية الجهازية (SLE) وفقدان الحمل المتكرر (RPL)، مع إجراء فحص منهجي للمؤشرات الحيوية النسخية المشتركة. وحسب علمنا، تعد هذه الدراسة الأولى التي تدمج المندلية العشوائية ثنائية الاتجاه، والتحليلات النسخية، وتحليلات الارتشاح المناعي لاستقصاء هذه العلاقة. وعلى الرغم من أن حجم تأثير المندلية العشوائية الملاحظ كان متواضعاً (IVW OR = 1.01)، إلا أن هذه العلاقة كانت مدعومة باستمرار من خلال طرق متعددة وتكاملية للمندلية العشوائية وتحليلات الحساسية دون وجود دليل على تباين جوهري، أو تعددية تأثيرات أفقية، أو قيم شاذة مؤثرة، مما يشير إلى أن العلاقة الملاحظة قوية إحصائياً ولكنها صغيرة كمياً. وبناءً على ذلك، ينبغي تفسير النتائج الحالية على أنها دليل يدعم مساهمة جينية متواضعة للذئبة الحمامية الجهازية في القابلية للإصابة بفقدان الحمل المتكرر بدلاً من كونها تأثيراً سريرياً كبيراً. ومن خلال دمج الاستدلال السببي مع التحقق النسخي وتحليلات الارتشاح المناعي، توفر هذه الدراسة إطاراً قابلاً للتكرار لتحديد أولويات المؤشرات الحيوية المرشحة للاضطرابات التناسلية المعقدة التي يتوسطها الجهاز المناعي. وقد أفادت دراسة أجريت في مصر بين عامي 2007 و2021، وشملت 123 امرأة مصابة بالذئبة الحمامية الجهازية وبإجمالي 201 حملاً، أن 20.4% من حالات الحمل لدى النساء المصابات بالذئبة الحمامية الجهازية انتهت بفقدان الجنين44. كما أشارت الدراسات السابقة بالمثل إلى أن الذئبة الحمامية الجهازية تعد عامل خطر هام لفقدان الحمل المتكرر لأن الخلل في التنظيم المناعي قد يزيد من احتمالية فقدان الحمل12.
كشفت تحليلات المعلوماتية الحيوية أن الجينات 59 المشتركة والمتباينة التعبير (DEGs) كانت مثرية بشكل أساسي في المسارات المرتبطة بالاستجابات المناعية المضادة للفيروسات، والتصاق الخلايا، وتنظيم موت الخلايا المبرمج. قد تساهم العدوى الفيروسية في إمراضية مرض الذئبة الحمامية الجهازية (SLE). غالبًا ما يظهر المرضى المصابون بـ SLE خللاً في كل من الاستجابات المناعية الفطرية والتكيفية45,46، مما يجعلهم أكثر عرضة للإصابات الفيروسية. وهذه القابلية المتزايدة قد تساهم في فقدان الحمل من خلال آليات مثل التهاب المشيمة وإصابة خلايا المشيمة47. وباعتبارها مكونًا أساسيًا للمشيمة، فقد ارتبطت التغيرات في الالتهام الذاتي والسلوك البيولوجي للخلايا الغاذية بحدوث الإجهاض المتكرر (RPL)48,49. وتشير هذه الملاحظات مجتمعة إلى أن الخلل المناعي المرتبط بـ SLE قد يؤثر على نتائج الحمل من خلال التأثير على وظيفة الخلايا الغاذية. وحددت تحليلات إضافية جيني IFI27 و CXCL11 كجينات مركزية مرشحة مشتركة بين SLE و RPL. ومع ذلك، تم إعطاء الأولوية لـ IFI27 في التحليلات اللاحقة لأنه أظهر اتساقًا بيولوجيًا أكبر عبر مجموعات البيانات المستقلة. وعلى الرغم من اختيار كلا الجينين بواسطة نموذج LASSO، إلا أن IFI27 وحده أظهر تعبيرًا متباينًا متسقًا في كل من مجموعات بيانات الاكتشاف والتحقق الخارجية، بينما لم يتم تكرار نتائج CXCL11 بشكل متسق في مجموعات بيانات التحقق. علاوة على ذلك، أظهر IFI27 تمييزًا تشخيصيًا أقوى لـ RPL وظل مختلاً بشكل كبير عبر مجموعات بيانات الدم والأنسجة التناسلية. وإجمالاً، تدعم هذه النتائج كون IFI27 مؤشراً حيوياً مرشحاً أكثر قوة من CXCL11، رغم الحاجة إلى مزيد من التحقق التجريبي. وقد أظهر التحقق باستخدام مجموعة بيانات SLE رقم GSE50772 ومجموعة بيانات RPL رقم GSE198700 أن تعبير IFI27 ظل مختلاً بشكل متسق عبر مجموعات بيانات التحقق. ومن الجدير بالذكر أن IFI27 كان مفرط التعبير في عينات الدم من المرضى المصابين بـ SLE، وهو ما يتوافق مع الدراسات السابقة50، ولكنه كان منخفض التعبير في عينات بطانة الرحم والزغابات الكوريونية من المرضى المصابين بـ RPL. قد يعكس هذا النمط المتناقض الاختلافات بين الخلل المناعي الجهازي والبيئة المناعية المحلية عند الواجهة بين الأم والجنين في حالات SLE المصحوبة بـ RPL.
يُعد IFI27 جينًا محفزًا بـ الإنترفيرون يشارك في المناعة المضادة للفيروسات، وإشارات الإنترفيرون، والاستجابات المناعية للمضيف عقب العدوى الفيروسية51,52. وفي الحمل الطبيعي، يزداد تعبير IFI27 بشكل ملحوظ في الخلايا الأرومية الغاذية53، مما يشير إلى دور فسيولوجي مهم في الحفاظ على وظيفة الخلايا الأرومية الغاذية. وفي المقابل، أظهرت تحليلاتنا انخفاضًا في تعبير IFI27 في بطانة الرحم والزغابات الكوريونية لدى المريضات المصابات بـ RPL. ورغم أن هذه النتيجة تختلف عن بعض التقارير السابقة54، إلا أنه يجب تفسيرها بحذر لأن الدراسة الحالية دمجت مجموعات بيانات ترانسكريبتومية مستمدة من أنسجة مختلفة بدلاً من عينات متطابقة من الأم والجنين. وأحد التفسيرات المحتملة هو أن التنشيط الجهازي المزمن لـ الإنترفيرون من النوع I في SLE يحفز إشارات إنترفيرون مستمرة في الخلايا المناعية الدوارة، بينما يعزز في الوقت ذاته فقدان حساسية المستقبلات، أو الإنهاك المناعي، أو آليات التغذية الراجعة السلبية التعويضية عند الواجهة الأمومية الجنينية. وبدلاً من ذلك، قد يؤدي التنظيم فوق الجيني الخاص بالأنسجة أو الاختلافات في التركيب الخلوي بين الدم المحيطي والأنسجة التناسلية إلى تثبيط تعبير IFI27 الموضعي على الرغم من التنشيط الجهازي للإنترفيرون. تظل هذه الفرضيات تخمينية وتتطلب تحققًا ميكانيكيًا باستخدام عينات متطابقة من دم الأم، وأنسجة بطانة الرحم، وعينات الخلايا الأرومية الغاذية، ويفضل أن يكون ذلك على مستوى الخلية الواحدة، للتمييز بين الآليات التنظيمية الخاصة بالأنسجة وتلك الخاصة بنوع الخلية55.
أشار تحليل الارتشاح المناعي إلى وجود فروق ذات دلالة إحصائية في بصمات الخلايا المناعية في كل من مرض الذئبة الحمامية الجهازية (SLE) ومتلازمة الإجهاض المتكرر (RPL)، والتي تميزت بشكل أساسي بتغيرات في المجموعات الخلوية المرتبطة بخلايا T من النوع CD4+. وكان تعبير IFI27 مرتبطاً بشكل إيجابي بإثراء خلايا Th2 في كلا المرضين؛ ومع ذلك، فإن هذه النتائج تمثل ارتباطات حاسوبية مشتقة من تحليل ssGSEA وليس تفاعلات بيولوجية تم التحقق منها تجريبياً. وقد أظهرت الدراسات السابقة أن الدم المحيطي للمرضى المصابين بـ SLE يحتوي على نسب منخفضة من خلايا Th1 وخلايا Treg ولكن نسباً مرتفعة من خلايا Th256,57، وهو ما يتفق مع نتائجنا. وخلال الحمل الطبيعي، ينتقل التوازن المناعي Th1/Th2 عند الواجهة الأمومية الجنينية نحو حالة سائدة من Th258. وبناءً على ذلك، فإن انخفاض تعبير IFI27 في الأنسجة التناسلية قد يعكس تغيرات في الاستتباب المناعي المحلي المرتبط بضعف التسامح الأمومي الجنيني، رغم أن تحديد ما إذا كان IFI27 ينظم هذه العملية بشكل مباشر لا يزال يتطلب التحقق تجريبياً.
يجب الإقرار بعدة قيود. أولاً، على الرغم من أن تحليلات MR دعمت وجود ارتباط سببي، إلا أن التأثير الجيني المقدر كان صغيراً نسبياً، مما يشير إلى أن SLE يمثل مكوناً واحداً فقط من مسببات المرض متعددة العوامل لـ RPL. ثانياً، تضمنت عملية التكامل الترانسكريبتومي مجموعات بيانات تم الحصول عليها من أنسجة مختلفة (الدم المحيطي، وبطانة الرحم، والزغابات الكوريونية)، ومنصات مصفوفات دقيقة مختلفة، وأتراب مستقلة، وهو ما قد يؤدي إلى تباين بيولوجي وتقني رغم التحقق المتسق من IFI27. ثالثاً، تضمنت مجموعة التحقق الخارجية للزغابات الكوريونية عدداً محدوداً من العينات، مما قد يقلل من القوة الإحصائية والقدرة على تعميم النتائج. رابعاً، ونظراً لأن مجموعات البيانات المتاحة علناً احتوت على معلومات سريرية محدودة، تعذر التقييم الكامل لعوامل مهمة، بما في ذلك نشاط المرض، وحالة الأجسام المضادة للفوسفوليبيد، والتعرض للأدوية، ومرحلة الحمل، والمتغيرات السريرية المصاحبة الأخرى. وأخيراً، رغم أن الفحص باستخدام PhenoScanner قلل من احتمالية التداخلات المتعددة في تحليلات MR، إلا أنه لا يمكن استبعاد وجود عوامل تداخل متبقية بشكل كامل.
من منظور ترجمي، ينبغي اعتبار IFI27 حالياً بمثابة مؤشر حيوي مرشح بدلاً من كونه مؤشراً تشخيصياً مصدقاً سريرياً. وقبل التطبيق السريري، هناك حاجة إلى دراسات مستقبلية متعددة المراكز للتحقق من أدائه التشخيصي عبر مجموعات سكانية متنوعة، ووضع منصات مقايسة وعتبات تشخيصية موحدة، وتحديد كيفية تأثير مرحلة الحمل ونشاط المرض والعلاج الكابح للمناعة على تعبير IFI27. كما ستكون التجارب الوظيفية، جنباً إلى جنب مع تحليلات النسخ المكاني والنسخ أحادي الخلية، ضرورية لتوضيح ما إذا كان IFI27 يساهم بنشاط في التنظيم المناعي بين الأم والجنين أم أنه يعكس ببساطة التنشيط المناعي المدفوع بالإنترفيرون.
الإفصاحات
تضارب المصالح:
يصرح المؤلفون بأنه لا توجد لديهم أي مصالح مالية أو غير مالية متضاربة.
شكر وتقدير
تم دعم هذا العمل من قبل مشروع دمج الطب الصيني التقليدي والطب الغربي للأمراض الصعبة الرئيسية التابع لإدارة بكين للطب الصيني التقليدي (2023BJSZDYNJBXTGG-003)، وصندوق البحوث العلمية للمصلحة العامة على المستوى الوطني لأعمال البحوث الأساسية للمعاهد (ZZ16-XRZ-038)، ومشروع تعزيز المستشفيات الطبية الصينية رفيعة المستوى (HLCMHPP2023087). لم يكن لمصادر التمويل أي دور في تصميم الدراسة، أو جمع البيانات، أو تحليل البيانات، أو تفسير البيانات، أو إعداد المخطوطة، أو قرار تقديم المخطوطة للنشر. يشكر المؤلفون الباحثين والمشاركين في دراسة FinnGen، وUK Biobank، وGene Expression Omnibus (GEO) التابع للمركز الوطني لمعلومات التكنولوجيا الحيوية لإتاحة مجموعات بياناتهم للعامة. كما يقر المؤلفون بدور اتحاد FinnGen، الذي يدمج عينات البنوك الحيوية الفنلندية مع بيانات السجل الصحي على مستوى البلاد من خلال التعاون بين المنظمات البحثية والبنوك الحيوية الفنلندية والشركاء الدوليين.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| مجموعة البصمة الجينية لـ 28 خلية مناعية | مورد بصمة جينية إضافي منشور | قائمة جينات علامات الخلايا المناعية التكميلية الموصوفة بواسطة Charoentong وآخرون (المرجع 42) | غير قابل للتطبيق معرف مورد البحث (RRID): غير متوفر الغرض / ملاحظات: توقيعات الخلايا المناعية المستخدمة في تحليل إثراء مجموعة الجينات المفردة (ssGSEA). |
| معرفة الجهاز العصبي المركزي (CNSknowall) | منصة CNSknowall الإلكترونية | ملفات مخرجات DAVID | غير قابل للتطبيق معرف مورد أبحاث (RRID): غير متاح الغرض / ملاحظات: تصوير نتائج الإثراء الوظيفي المصفاة. |
| محطة عمل حاسوبية | بيئة الحوسبة المؤسسية | غير قابل للتطبيق | غير قابل للتطبيق معرف مورد الأبحاث (RRID): غير قابل للتطبيق الغرض / ملاحظات: التحليلات الحاسوبية. |
| المواد الاستهلاكية | غير قابل للتطبيق | غير قابل للتطبيق | غير قابل للتطبيق معرف مورد البحث (RRID): غير قابل للتطبيق الغرض / ملاحظات: لم تُستخدم أي مستهلكات مختبرية رطبة. |
| Cytoscape | اتحاد سيتوسكيب (Cytoscape Consortium) | غير قابل للتطبيق | 3.10.0 معرّف مورد الموارد (RRID): SCR_003032 الغرض / ملاحظات: بروتين–تصوير شبكة التفاعلات البروتينية وتحليل الطوبولوجيا. |
| cytoHubba | متجر تطبيقات Cytoscape | غير قابل للتطبيق | 0.1 معرف مورد الأبحاث (RRID): SCR_017677 الغرض / ملاحظات: تصنيف الجينات المحورية باستخدام معامل ارتباط ماككولورز (MCC)، والمركزية المتوسطة (MNC)، ومركزية ممتد المسار (EPC)، والدرجة (Degree)، والقرب (Closeness)، والقطرية (Radiality). |
| أداة DAVID للتوصيف الوظيفي | المعاهد الوطنية للصحة / المعهد الوطني للسرطان | تم تحميل قوائم الجينات ذات التعبير التفاضلي (DEG) المشتركة وقوائم الجينات الخلفية | 2021 معرف المصادر البحثية (RRID): SCR_001881 الغرض / ملاحظات: تحليل إثراء الأنطولوجيا الجينية ومسارات KEGG. |
| لوحة مرجعية لعدم الاتزان الارتباطي (LD) الأوروبية | مشروع الـ 1000 جينوم / IEU OpenGWAS | لوحة المرحلة الثالثة الأوروبية (المتغيرات المتوافقة مع GRCh37) | المرحلة الثالثة معرف مورد الأبحاث (RRID): لم يتم الإبلاغ عنه الغرض / ملاحظات: تجميع عدم التوازن الارتباطي من خلال سير عمل OpenGWAS/TwoSampleMR. |
| فينجين (FinnGen) | اتحاد FinnGen | finngen_R11_L12_LUPUS | الإصدار 11 المعرف الفريد للموارد البحثية (RRID): SCR_022254 الغرض / ملاحظات: الإحصائيات الملخصة لدراسة الارتباط الجينومي الكامل لمرض الذئبة الحمامية. |
| forestploter | شبكة ريبونات الحمض النووي الريبوزي الشاملة (CRAN) | غير قابل للتطبيق | 1.1.2 معرف الموارد البحثية (RRID): غير متاح الغرض / ملاحظات: تمثيل بياني بمخطط غابة لتقديرات العشوائية المندلية. |
| مستودع التعبير الجيني (GEO) | المركز الوطني لمعلومات التقانة الحيوية | GSE61635؛ GSE165004؛ GSE50772؛ GSE198700 | غير قابل للتطبيق معرف مورد الأبحاث (RRID): SCR_005012 الغرض / ملاحظات: مصدر مجموعات بيانات النسخ الخاصة بالاكتشاف والتحقق. |
| الأنطولوجيا الجينية | اتحاد الوجودية الجينية | مصطلحات الأنطولوجيا الجينية (GO terms) التي تم الوصول إليها عبر DAVID | توضيحات DAVID 2021 معرف مورد الأبحاث (RRID): SCR_002811 الغرض / ملاحظات: توصيف العمليات البيولوجية، والمكونات الخلوية، والوظائف الجزيئية. |
| ggcorrplot | شبكة أرشيف R الشاملة (CRAN) | غير قابل للتطبيق | 0.1.4.1 معرف مورد البحث (RRID): غير متوفر الغرض / ملاحظات: تصوير الجين المرشح–مصفوفات ارتباط الخلايا المناعية. |
| ggplot2 | شبكة الشؤون العامة الشاملة (CRAN) | غير قابل للتطبيق | 3.5.1 معرف مورد الأبحاث (RRID): SCR_014601 الغرض / ملاحظات: مخططات البركان، والمخططات الصندوقية، والرسوم البيانية الإحصائية الأخرى. |
| ggvenn | CRAN | غير قابل للتطبيق | 0.1.16 معرّف مورد الأبحاث (RRID): SCR_025300 الغرض / ملاحظات: تصوير الجينات ذات التعبير التفاضلي المشتركة. |
| glmnet | شبكة أرشيف R الشاملة (CRAN) | غير قابل للتطبيق | 4.1-8 معرف مورد البحث (RRID): SCR_015505 الغرض / ملاحظات: انحدار لاسو اللوجستي والتحقق المتقاطع. |
| GSE165004 | NCBI GEO | GSE165004 / GPL16699 | مصفوفة السلسلة المُعالجة معرف مورد البحث: SCR_005012 الغرض / ملاحظات: مجموعة بيانات اكتشاف بطانة الرحم لحالات فقدان الحمل المتكرر. |
| GSE198700 | قاعدة بيانات NCBI GEO | GSE198700 / GPL13534 | مصفوفة السلاسل المُعالجة معرف مورد الأبحاث (RRID): SCR_005012 الغرض / ملاحظات: مجموعة بيانات تحقق مستقلة لزغابات كوريونية في حالات الإجهاض المتكرر. |
| GSE50772 | قاعدة بيانات NCBI GEO | GSE50772 / GPL570 | مصفوفة السلاسل المُعالجة معرف مورد البحث (RRID): SCR_005012 الغرض / ملاحظات: مجموعة بيانات تحقق مستقلة للخلايا أحادية النواة في الدم المحيطي لمرضى الذئبة الحمامية الجهازية (SLE). |
| GSE61635 | قاعدة بيانات NCBI GEO | GSE61635 / GPL570 | مصفوفة السلاسل المعالجة معرف المصادر البحثية (RRID): SCR_005012 الغرض / ملاحظات: مجموعة بيانات الاستكشاف للدم الكامل لمرض الذئبة الحمامية الجهازية (SLE). |
| GSEABase | Bioconductor | غير قابل للتطبيق | 1.66.0 معرف مورد البحث (RRID): غير متوفر الغرض / ملاحظات: إدارة مجموعات جينات الخلايا المناعية لتحليل ssGSEA. |
| تحليل التباين في مجموعة الجينات (GSVA) | Bioconductor | غير قابل للتطبيق | 1.52.3 معرف الموارد البحثية (RRID): SCR_021058 الغرض / ملاحظات: تحليل إثراء مجموعة الجينات للعينة الواحدة (ssGSEA). |
| IEU OpenGWAS | وحدة الوبائيات التكاملية التابعة لمجلس البحوث الطبية (MRC) | ukb-b-419; finngen_R11_L12_LUPUS | غير قابل للتطبيق معرف مورد البحث (RRID): لم يتم الإبلاغ عنه الغرض / ملاحظات: استرجاع الإحصائيات الملخصة لدراسات الارتباط الجينومي الواسع (GWAS) وبيانات الارتباط الجيني المنسقة. |
| موسوعة كيوتو للجينات والجينومات (KEGG) | مختبرات كانيهيسا (Kanehisa Laboratories) | مسارات KEGG التي تم الوصول إليها عبر DAVID | تعليقات DAVID 2021 معرف مورد الأبحاث (RRID): SCR_012773 الغرض / ملاحظات: توصيف إثراء المسارات. |
| limma | Bioconductor | غير قابل للتطبيق | 3.60.6 معرف مورد البحث (RRID): SCR_010943 الغرض / ملاحظات: تحليل التعبير التفاضلي. |
| MRPRESSO | فربانك وآخرون. | غير قابل للتطبيق | 1 معرف المصدر البحثي (RRID): SCR_023697 الغرض / ملاحظات: الكشف عن تعدد الأنماط الظاهرية الأفقي والمتغيرات الأدواتية الشاذة. |
| الخريطة الحرارية المجمعة (pheatmap) | شبكة مستودع آر (CRAN) | غير قابل للتطبيق | 1.0.12 معرف مورد البحث (RRID): SCR_016418 الغرض / ملاحظات: خرائط الحرارة للتعبير. |
| PhenoScanner V2 | ائتلاف PhenoScanner | استعلامات النمط الظاهري على مستوى تعدد أشكال النوكليوتيدات المفردة (SNP) | الإصدار 2 معرّف مورد الموارد (RRID): غير متاح الغرض / ملاحظات: فحص تعددات النوكليوتيدات المفردة (SNPs) المستبقاة بحثاً عن ارتباطات محتملة بالأنماط الظاهرية المربكة. |
| منحنى خصائص تشغيل المستقبِل (pROC) | CRAN | غير قابل للتطبيق | 1.18.5 معرف مورد البحث (RRID): SCR_024286 الغرض / ملاحظات: منحنيات خصائص تشغيل المستقبل (ROC curves)، والمساحات تحت المنحنى (AUCs)، وفترات ثقة ديلونج (DeLong confidence intervals)، ونقاط القطع وفق مؤشر يودين (Youden-index cutoffs)، وفترات ثقة البوتستراب (bootstrap confidence intervals). |
| R | مؤسسة R للحوسبة الإحصائية | غير قابل للتطبيق | 4.4.2 معرف الموارد البحثية (RRID): SCR_001905 الغرض / ملاحظات: بيئة الحوسبة الإحصائية. |
| الكواشف | غير قابل للتطبيق | غير قابل للتطبيق | غير قابل للتطبيق معرف مورد البحوث (RRID): غير قابل للتطبيق الغرض / ملاحظات: لم يتم استخدام أي كواشف مخبرية رطبة. |
| يرجى تزويدي بالنص المصدر (STRING) الذي ترغب في ترجمته، وسأقوم فوراً بتحويله إلى اللغة العربية وفقاً للمعايير العلمية والأكاديمية المحددة في تعليماتك. | اتحاد STRING | الإنسان العاقل (*Homo sapiens*) (التاكسون 9606)؛ الحد الأدنى لدرجة التفاعل 0.400 | 11 معرف مصدر الموارد (RRID): SCR_005223 الغرض / ملاحظات: بروتين–بناء شبكة تفاعلات البروتين. |
| TwoSampleMR | وحدة MRC لعلم الوبائيات التكاملي | غير قابل للتطبيق | 0.6.6 معرف مورد البحث (RRID): SCR_019010 الغرض / ملاحظات: العشوائية المندلية ثنائية الاتجاه والعينات المزدوجة، واستخراج البيانات، والمواءمة، والتقدير السببي، وتحليلات الحساسية. |
| البنك الحيوي البريطاني (UK Biobank) | البنك الحيوي البريطاني (UK Biobank) | ukb-b-419 | مجموعة بيانات ملخص عام 2018 معرف المصدر المرجعي (RRID): SCR_012815 الغرض / ملاحظات: إحصائيات ملخصة لدراسة الارتباط الجينومي الكامل (GWAS) لعدد حالات الإجهاض التلقائي. |
المراجع
- Petri M. Pregnancy and systemic lupus erythematosus. Best Pract Res Clin Obstet Gynaecol. 2020;64:24-30.
- Zhao X, et al. Advances in drug therapy for systemic lupus erythematosus. Curr Med Chem. 2021;28(7):1251-1268.
- Stanescu II, et al. Salivary biomarkers of inflammation in systemic lupus erythematosus. Ann Anat. 2018;219:89-93.
- Tian J, Zhang D, Yao X, Huang Y, Lu Q. Global epidemiology of systemic lupus erythematosus: A comprehensive systematic analysis and modelling study. Ann Rheum Dis. 2023;82(3):351-356.
- Palma Dos Reis CR, et al. Prediction of adverse pregnancy outcomes in women with systemic lupus erythematosus. Clin Rev Allergy Immunol. 2020;59(2):287-294.
- Venne K, Scott S, Bernatsky S, Vinet E. Induced abortions in women with systemic lupus erythematosus. Lupus. 2021;30(4):484-488.
- Kim JW, et al. Lupus low disease activity state achievement is important for reducing adverse outcomes in pregnant patients with systemic lupus erythematosus. J Rheumatol. 2021;48(5):707-716.
- Braga A, et al. Systemic lupus erythematosus and pregnancy: A Portuguese case-control study. Clin Rev Allergy Immunol. 2022;62(2):324-332.
- Dimitriadis E, Menkhorst E, Saito S, Kutteh WH, Brosens JJ. Recurrent pregnancy loss. Nat Rev Dis Primers. 2020;6(1):98.
- Quenby S, et al. Miscarriage matters: The epidemiological, physical, psychological, and economic costs of early pregnancy loss. Lancet. 2021;397(10285):1658-1667.
- Valeff NJ, Ventimiglia MS, Diao L, Jensen F. Lupus and recurrent pregnancy loss: The role of female sex hormones and B cells. Front Endocrinol (Lausanne). 2023;14:1233883.
- Gao R, Zeng X, Qin L. Systemic autoimmune diseases and recurrent pregnancy loss: Research progress in diagnosis and treatment. Chin Med J (Engl). 2021;134(17):2140-2142.
- Pantham P, Abrahams VM, Chamley LW. The role of anti-phospholipid antibodies in autoimmune reproductive failure. Reproduction. 2016;151(5):R79-R90.
- Meroni PL, et al. Updating on the pathogenic mechanisms of antiphospholipid antibody-associated pregnancy loss. Clin Rev Allergy Immunol. 2008;34(3):332-337.
- Blank M, Shoenfeld Y. Antiphospholipid antibody-mediated reproductive failure in antiphospholipid syndrome. Clin Rev Allergy Immunol. 2010;38(2–3):141-147.
- Babker A, et al. Frequency of ACE I/D and PAI-1 4G/5G polymorphisms in women with recurrent pregnancy loss in Sudan. Biomed Pharmacol J. 2025;18(3):1953-1961.
- Babker AM, et al. Detection of human platelet antigen polymorphisms (HPA-1 and HPA-3) and factor XIII mutation in Sudanese women with recurrent pregnancy loss. BMC Res Notes. 2024;17(1):66.
- Grover S, Del Greco MF, Stein CM, Ziegler A. Mendelian randomization. Methods Mol Biol. 2017;1666:581-628.
- Skrivankova VM, et al. Strengthening the reporting of observational studies in epidemiology using Mendelian randomization: The STROBE-MR statement. JAMA. 2021;326(16):1614-1621.
- Emdin CA, Khera AV, Kathiresan S. Mendelian randomization. JAMA. 2017;318(19):1925-1926.
- Burgess S, Thompson SG, CRP CHD Genetics Collaboration. Avoiding bias from weak instruments in Mendelian randomization studies. Int J Epidemiol. 2011;40(3):755-764.
- Hemani G, et al. The MR-Base platform supports systematic causal inference across the human phenome. eLife. 2018;7:e34408.
- Bowden J, Davey Smith G, Burgess S. Mendelian randomization with invalid instruments: Effect estimation and bias detection through Egger regression. Int J Epidemiol. 2015;44(2):512-525.
- Bowden J, Davey Smith G, Haycock PC, Burgess S. Consistent estimation in Mendelian randomization with some invalid instruments using a weighted median estimator. Genet Epidemiol. 2016;40(4):304-314.
- Hartwig FP, Davey Smith G, Bowden J. Robust inference in summary data Mendelian randomization via the zero modal pleiotropy assumption. Int J Epidemiol. 2017;46(6):1985-1998.
- Burgess S, Butterworth A, Thompson SG. Mendelian randomization analysis with multiple genetic variants using summarized data. Genet Epidemiol. 2013;37(7):658-665.
- Verbanck M, Chen CY, Neale B, Do R. Detection of widespread horizontal pleiotropy in causal relationships inferred from Mendelian randomization between complex traits and diseases. Nat Genet. 2018;50(5):693-698.
- Barrett T, et al. NCBI GEO: Archive for functional genomics data sets—update. Nucleic Acids Res. 2013;41(Database issue):D991-D995.
- Keleş İD, et al. Gene pathway analysis of the endometrium at the start of the window of implantation in women with unexplained infertility and unexplained recurrent pregnancy loss: Is unexplained recurrent pregnancy loss a subset of unexplained infertility? Hum Fertil (Camb). 2023;26(5):1129-1141.
- Kennedy WP, et al. Association of the interferon signature metric with serological disease manifestations but not global activity scores in multiple cohorts of patients with SLE. Lupus Sci Med. 2015;2(1):e000080.
- Matsumoto Y, et al. Characteristic DNA methylation profiles of chorionic villi in recurrent miscarriage. Sci Rep. 2022;12(1):11673.
- Sherman BT, Lempicki RA. Systematic and integrative analysis of large gene lists using DAVID bioinformatics resources. Nat Protoc. 2009;4(1):44-57.
- Szklarczyk D, et al. STRING v11: Protein–protein association networks with increased coverage, supporting functional discovery in genome-wide experimental datasets. Nucleic Acids Res. 2019;47(D1):D607-D613.
- Shannon P, et al. Cytoscape: A software environment for integrated models of biomolecular interaction networks. Genome Res. 2003;13(11):2498-2504.
- Jia P, Zheng S, Long J, Zheng W, Zhao Z. dmGWAS: Dense module searching for genome-wide association studies in protein–protein interaction networks. Bioinformatics. 2011;27(1):95-102.
- Chin CH, et al. cytoHubba: Identifying hub objects and subnetworks from complex interactome. BMC Syst Biol. 2014;8(Suppl 4):S11.
- Mohammadi M. A projection neural network for the generalized Lasso. IEEE Trans Neural Netw Learn Syst. 2020;31(6):2217-2221.
- Kumar R, Indrayan A. Receiver operating characteristic (ROC) curve for medical researchers. Indian Pediatr. 2011;48(4):277-287.
- de Hond AAH, Steyerberg EW, van Calster B. Interpreting area under the receiver operating characteristic curve. Lancet Digit Health. 2022;4(12):e853-e855.
- Xu H, et al. Single-cell transcriptomics reveals CCL3+ classical monocyte subset linked to autoimmune pathogenesis. J Inflamm Res. 2025;18:16273-16291.
- Zych M, et al. Surface immune checkpoints as potential biomarkers in physiological pregnancy and recurrent pregnancy loss. Int J Mol Sci. 2024;25(17):9378.
- Charoentong P, et al. Pan-cancer immunogenomic analyses reveal genotype-immunophenotype relationships and predictors of response to checkpoint blockade. Cell Rep. 2017;18(1):248-262.
- Liu J, Lu J, Wang G, Gu L, Li W. Prognostic characteristics of a six-gene signature based on ssGSEA in sarcoma. Aging (Albany NY). 2024;16(2):1536-1554.
- Mokbel A, et al. Pregnancy outcomes among Egyptian women with systemic lupus erythematosus: A prospective cohort study. Lupus. 2023;32(4):521-530.
- Illescas-Montes R, Corona-Castro CC, Melguizo-Rodríguez L, Ruiz C, Costela-Ruiz VJ. Infectious processes and systemic lupus erythematosus. Immunology. 2019;158(3):153-160.
- Banko A, et al. Epstein-Barr virus infection as a potential indicator of the occurrence and clinical presentation of systemic lupus erythematosus. Front Immunol. 2023;14:1307589.
- Nigro G, et al. Role of infections in recurrent spontaneous abortion. J Matern Fetal Neonatal Med. 2011;24(8):983-989.
- Yang D, et al. YY1-PVT1 affects trophoblast invasion and adhesion by regulating mTOR pathway-mediated autophagy. J Cell Physiol. 2020;235(10):6637-6646.
- Guan D, et al. Immunologic insights in recurrent spontaneous abortion: Molecular mechanisms and therapeutic interventions. Biomed Pharmacother. 2024;177:117082.
- Zhao X, et al. Identification of key biomarkers and immune infiltration in systemic lupus erythematosus by integrated bioinformatics analysis. J Transl Med. 2021;19(1):35.
- Villamayor L, et al. The IFN-stimulated gene IFI27 counteracts innate immune responses after viral infections by interfering with RIG-I signaling. Front Microbiol. 2023;14:1176177.
- Lim FY, et al. High-frequency home self-collection of capillary blood correlates IFI27 expression kinetics with SARS-CoV-2 viral clearance. J Clin Invest. 2023;133(23):e173715.
- Apps R, et al. Genome-wide expression profile of first-trimester villous and extravillous human trophoblast cells. Placenta. 2011;32(1):33-43.
- Li Y, et al. RNA sequencing of decidua reveals differentially expressed genes in recurrent pregnancy loss. Reprod Sci. 2021;28(8):2261-2269.
- Dankers W, et al. Failing maternal-fetal tolerance in SLE (FaMaLE): A prospective cohort study for finding the molecular mechanisms behind pregnancy complications. Lupus Sci Med. 2025;12(1):e001668.
- Xiang S, et al. Imbalance of helper T cell type 1, helper T cell type 2, and associated cytokines in patients with systemic lupus erythematosus: A meta-analysis. Front Pharmacol. 2022;13:988512.
- Tu J, et al. UC-BSC exosomes regulate Th17/Treg balance in patients with systemic lupus erythematosus via miR-19b/KLF13. Cells. 2022;11(24):4123.
- Wang W, et al. T helper (Th) cell profiles in pregnancy and recurrent pregnancy loss: Th1/Th2/Th9/Th17/Th22/Tfh cells. Front Immunol. 2020;11:2025.