الجينات المرتبطة ب N6-ميثيلادينوزين (m6A) غير منظمة في سرطان الثدي، مع ارتباط محدود بالميثلة أو تغييرات عدد النسخ النصيبية. ستة جينات، بما في ذلك YTHDF3، كانت تنبؤية. YTHDF3 هو عامل تنبؤي مستقل، يشارك في أيض الحمض النووي الريبي، وإصلاح الحمض النووي، واستقرار التيلوميرات، وتسلل المناعة. تم تأكيد زيادة تنظيمها سريريا، مما استدعي المزيد من التحقيق.
مقالة بحثية
يحدد التحليل الشامل لمنظمات m6A أن YTHDF3 مؤشر نبئي واعد لسرطان الثدي
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
لا تزال بيئة التعبير والقيمة التنبؤية للجينات المرتبطة ب N6-ميثيلادينوسين (m6A) غير موصوفة إلى حد كبير في سرطان الثدي. هنا، أجرينا تحليلا تكامليا لملفات تعبيرها وأهميتها السريرية. باستخدام مجموعات بيانات متعددة الأوميكس والتحقق التجريبي، أجرينا تحقيقا منهجيا لجينات مرتبطة ب m6A في سرطان الثدي. أظهرت هذه الجينات تعبيرا تفريقيا واضحا في سرطان الثدي، ومع ذلك كان ارتباطها بخصائص جزيئية مثل مثيلة المحفزات وتغيرات عدد النسخ محدودا. أظهر تحليل البقاء أحادي المتغير أن التعبير الشاذ عن RBM15B و METTL16 وHNRNPC وYTHDF1 وYTHDF3 و IGF2BP1 كان مرتبطا بشكل كبير بتوقعات المرضى. كما حدد الانحدار متعدد المتغيرات كوكس ارتفاع تعبير YTHDF3 كعامل تنبؤي مستقل. أشار تحليل الشبكات الوظيفية إلى أن YTHDF3 قد يكون متورطا ليس فقط في معالجة الحمض النووي الريبي والتمثيل الغذائي، بل أيضا في إصلاح الحمض النووي، ومعالجة بري-ميرنا الريبي، واستقرار التيلوميرات، وتسلل المناعة. علاوة على ذلك، تم تأكيد زيادة تنظيم الحمض النووي الريبي الريبي YTHDF3 في عينات سرطان الثدي السريرية. بشكل عام، الجينات المرتبطة ب m6A تعاني من اضطراب في سرطان الثدي وترتبط بنتائج المرضى، مما يبرز إمكاناتها كمؤشر حيوي، ويستحق YTHDF3 تحقيقا معمقا.
المقدمة
سرطان الثدي هو نوع من الأورام الخبيثة شديدة التجانس وأصبح أكثر أنواع السرطان تشخيصا على مستوى العالم، ويمثل سببا رئيسيا للوفيات المرتبطة بالسرطان بين النساء، حيث تم تسجيل ما يقدر ب 2.3 مليون حالة جديدة وأكثر من 680,000 حالة وفاة في عام 2020. على الرغم من التقدم العلاجي، لا يزال من الصعب إيجاد علاج نهائي لجميع المرضى، مما يبرز الحاجة إلى تحديد العلامات الحيوية الجزيئية للتشخيص المبكر والتوقعات المبكرة.
التعديلات اللاجينية الشاذة هي سمة مميزة للسرطان3. من بين تعديلات RNA المتنوعة، يعد N6-ميثيلادينوزين (m6A) علامة إلكترونية معروفة بشكل متزايد لدورها في سرطان الثدي4. m6A هو تعديل قابل للعكس يترسب، بشكل رئيسي في 3'-UTR في mRNA الثدييات، ويتم تنظيمه بواسطة "كتاب" (ميثيل ترانسفيراز)، "ممحاة" (ديميثيلازات)، و"قارئين" (بروتينات ربط)5. تشير الأدلة الناشئة إلى تورط جينات مرتبطة ب m6A في تطور وتقدم الورم6. ومع ذلك، لا يزال مشهد العوامل التنظيمية ل m6A في سرطان الثدي غير محدد جيدا، كما أن التحليلات الجينية والوراثية الشاملة والجينية غير موجودة.
في هذه الدراسة، حددنا جينات مرتبطة ب m6A المعبر عنها بشكل مختلف في سرطان الثدي باستخدام قواعد بيانات أوميكس العامة والتحقق التجريبي. قمنا بتقييم قيمتها التنبؤية السريرية واستكشفنا الآليات الجزيئية الكامنة من خلال تحليل البقاء والتنبؤ بالشبكات التنظيمية.
البروتوكول
بيانات التعبير الجيني والبقاء
تم الحصول على بيانات مجموعة أطلس جينوم السرطان (TCGA) التي تضم 1,034 عينة من أورام سرطان الثدي و104 أنسجة متجاورة طبيعية (NATs) من أطلس البروتين البشري، إلى جانب معلومات سريرية ل 947 مريضا7. تم استخدام هذه البيانات لتحليل ملفات تعبير mRNA لجينات m6A وارتباطها بالتوقعات المرضية. بالإضافة إلى ذلك، استخدمنا أداة كابلان-ماير للرسم الإلكتروني (KMplotter)، التي تجمع مجموعات بيانات متعددة لسرطان الثدي، للتحقق من العلاقة بين تعبير YTHDF3 والبقاءعلى قيد الحياة. ولزيادة التحقق من أنماط التعبير، قمنا أيضا بتضمين بيانات من 92 نسيج ثدي سليم من مشروع تعبير الجينوم-الأنسجة (GTEx) عبر أداة Breast Cancer Gene-Expression-Expression Miner v4.7 9,10. تم تحليل مستويات البروتين والmRNA في YTHDF3 في أنواع فرعية مختلفة من سرطان الثدي والأنسجة الطبيعية بواسطة UALCAN، استنادا إلى اتحاد تحليل الأورام البروتيومية السريرية (CPTAC) ومجموعة بيانات TCGAرقم 11.
التقييم الجيني والفوق جيني
تم فحص التغيرات الجينية باستخدام cBioPortal، مع التركيز على مجموعة بيانات سرطان الثدي الغازي (TCGA، مؤقتة، 1,108 حالة)12. تم استرجاع بيانات مثيلة البروستر من MethHC، والتي شملت 839 عينة من سرطان الثدي ومجموعة ضابطة متجاورة جزئية من المعدل الطبيعي13.
شبكة تنظيم الجينات وتحليل تسرب المناعة
تم استكشاف تفاعلات البروتين مع STRING (تم ضبط درجة الثقة على 0.4)14. تم إجراء التعليقات الجينية وإثراء المسار باستخدام Metascape (p < 0.01، الحد الأدنى للعدد 3، عامل الإثراء > 1.5)15. تم تحليل ارتباط تعبير YTHDF3 في سرطان الثدي بتسلل المناعة، بما في ذلك الخلايا البائية، خلايا CD8+ التائية، خلايا CD4+ التائية، البلاعميات، العدلات، والخلايا التغصنية (DCs)، باستخدام مورد تقدير المناعة الورمية (TIMER). تم عرض مستوى التعبير الجيني الطبيعي مع نقاء الورم في اللوحةاليسرى 16.
تفاعل بوليميراز التصوير العكسي الكمي (qRT-PCR)
قدم جميع المشاركين موافقة مكتوبة مستنيرة، وتمت الموافقة على الدراسة من قبل لجنة الأخلاقيات في المستشفى التابع لجامعة ساوثويست الطبية (رقم الموافقة). KY2022124) وأجريت وفقا لمبادئ إعلان هلسنكي. تم استخدام عينات أورام الثدي المجمدة والعينات غير الورمية المجاورة المتطابقة لاستخراج الحمض النووي الريبي الكلي. تم تقييم تركيز ونقاء الحمض النووي الريبي المستخرج باستخدام مقياس طياف، ولم تدرج سوى عينات بنسبةA 260/A 280 بين 1.8–2.0. تم تأكيد سلامة الحمض النووي الريبي بواسطة الرحلان الكهربائي الهلام للأجاروز بنسبة 1.5٪. ثم تم توليد cDNA للسلسلة الأولى من 1 ميكروغرام من إجمالي RNA في تفاعل بسعة 20 ميكرولتر وفقا لتعليمات الشركة المصنعة. تم إجراء PCR كمي في الوقت الحقيقي، حيث احتوى كل تفاعل بحجم 20 ميكرولتر على 10 ميكرولتر من 2× خليط SYBR Green الرئيسي، و0.4 ميكرولتر من المبادئ الأمامية والعكسية (كل منها 10 ميكرومول)، و2 ميكرولتر من cDNA مخفف (1:10)، و7.2 ميكرولتر من الماء الخالي من النوكليز. تم إجراء qRT-PCR كما تم وصفهسابقا 17. كانت البادئات: β-أكتين-F، GAAGATCAAGATCATTGCTCCT؛ β-أكتين-R، TACTCCTGCTTGCTGATCCA؛ YTHDF3-F، AAAAGACGGGCCTCTTCCTCTCTCTCTCTC; YTHDF3-R، TTGGCCGAGTGATGTTTTCCA. كانت ظروف التدوير الحراري 95 درجة مئوية لمدة 3 دقائق، تلتها 40 دورة بدرجة حرارة 95 درجة مئوية لمدة 10 ثوان، و55 درجة مئوية لمدة 20 ثانية، و72 درجة مئوية لمدة 20 ثانية (اكتساب الفلورة عند 72 درجة مئوية). تم إجراء تحليل منحنى الصهر (من 95 درجة مئوية إلى 60 درجة مئوية، بزيادة 0.5 درجة مئوية/ثانية) لتأكيد خصوصية البرايمر. تم حساب التعبير النسبي باستخدام طريقة 2−ΔΔCt .
الطريقة الإحصائية
تم استخدام اختبارات t غير مزدوجة في المقارنات بين مجموعتين. تم استخدام تحليل البقاء على قيد الحياة بنظام كابلان-ماير مع اختبار التصنيف اللوغاريتمي وانحدار كوكس متعدد المتغيرات لتقييم العوامل التنبؤية. للتحقق من qRT-PCR، تم مقارنة العينات المزدوجة باستخدام اختبار t ثنائي الطرفين من Student على قيم ΔCt. بالنسبة للشكل 1، أجريت مقارنات زوجية باستخدام اختبار دانيت-توكي-كريمر. تم اعتبار P < 0.05 ذات دلالة إحصائية.
النتائج
التعبير التفاضلي عن mRNA لجينات m6A في سرطان الثدي
كشف تحليل بيانات TCGA وGTEx (1,034 ورما، 104 ورم NAT، 92 نسيج سليم) أن معظم الجينات المرتبطة ب m6A كانت معبرة بشكل تفاضلي (الشكل 1). مقارنة بأنسجة الثدي السليمة، تم زيادة كبيرة في 10 جينات: KIAA1429، RBM15، RBM15B، HNRNPC، YTHDF1، YTHDF2، YTHDF3، IGF2BP1، IGF2BP3، وALKBH5 (جميعها P < 0.0001، باستثناء RBM15 P < 0.001). تم تقليل تنظيم ثمانية جينات: WTAP، METTL3، METTL14، HNRNPA2B1، YTHDC1، YTHDC2، IGF2BP2، وFTO (P < 0.05 إلى P < 0.0001). لم يظهر METTL16 وeIF3A أي فرق معنوي. عند مقارنة الأورام مع NATs، تم رفع HNRNPA2B1 التنظيم، بينما تم تقليل تنظيم YTHDF3 وeIF3A وALKBH5؛ لم تظهر RBM15 وRBM15B وYTHDF2 أي فرق (الشكل 1). تم التشكيك في استخدام NATs كأدوات تحكم، مما قد يفسر الفروق مع مقارنات الأنسجة السليمة18,19. ومن المثير للاهتمام أن اتجاها نحو زيادة وفرة بروتين YTHDF3 عبر جميع الأنواع الفرعية لسرطان الثدي لوحظ في مجموعة بيانات CPTAC مقارنة بالأنسجة الطبيعية (P < 0.0001). بالإضافة إلى ذلك، لوحظ تعبير mRNA أعلى بشكل ملحوظ ل YTHDF3 فقط في الأنواع الفرعية الضوئية من سرطان الثدي مقارنة بالأنسجة الطبيعية (P = 0.004، < 0.01) (الشكل التكميلي S1). بشكل عام، يظهر اضطراب كبير في الجينات المرتبطة ب m6A في سرطان الثدي.
مثيلة المحفزات وتضخيم جينات الجينات المرتبطة ب m6A في سرطان الثدي
تلعب مثيلة الحمض النووي دورا مهما في تنظيم النسخ الجيني فوق الجيني (فوق الجيني لنسخ الجينات)، ويقوم فرط المثيلة المسبب بثبط تعبير mRNA20. أظهر تحليل ميثHC فروقا كبيرة في مثيلة المحفزات فقط في IGF2BP1 و IGF2BP2 و IGF2BP3 في الأورام مقارنة بالمجموعات الضابطة (P < 0.005). قد يعزى انخفاض تنظيم IGF2BP2 mRNA جزئيا إلى فرط مثيلة الميثلة الخاص به. أظهر تحليل cBioPortal أن WTAP و ALKBH5 أظهرا تراجعا في الحمض النووي الريبي المغناطيسي (mRNA)، بينما أظهرت KIAA1429 (VIRMA)، YTHDF1، YTHDF3، و IGF2BP1 تضخيم جيني مرتبط بزيادة تنظيمها (الشكل التكميلي S2، الشكل التكميلي S3، والشكل التكميلي S4). تشير هذه النتائج إلى أن مستويات mRNA في جينات m6A ليست مدفوعة بشكل رئيسي بميثلة المحفز أو تضخيم الجينات.
تحليل البقاء للجينات المرتبطة ب m6A في سرطان الثدي
كشف تحليل البقاء على قيد الحياة ل 947 مريضا أن انخفاض التعبير عن RBM15B وارتفاع تعبير METTL16 وHNRNPC وYTHDF1 وYTHDF3 و IGF2BP1 كانت مرتبطة بشكل ملحوظ بانخفاض البقاء الكلي (الشكل 2 والشكل 3). أكد الانحدار متعدد المتغيرات لكوكس، مع تعديل العمر والمرحلة والعرق، أن زيادة تنظيم YTHDF3 كانت مؤشرا مستقلا على ضعف البقاء العام (معدل ضربات قلب: 1.024، فترة الثقة 95٪: 1.003–1.046، P = 0.024) (الجدول 1). للتحقق الخارجي، أظهر التحليل باستخدام أداة KMplotter الإلكترونية أن التعبير العالي ل YTHDF3 يتنبأ بتوقعات سيئة للمرض (الشكل التكميلي S5). لم تكن الجينات الأخرى ذات دلالة مستقلة (الجدول التكميلي S1).
الشبكة الجزيئية المحتملة والتسلل المناعي للجين المرتبط ب m6A YTHDF3
حدد تحليل الأوتار ل YTHDF3 (مع تفاعلات محدودة إلى 50) شبكة بها 224 حافة وإثراء كبير (P < 1e-16). يرتبط YTHDF3 ارتباطا وثيقا ب METTL3 وALKBH5 وWTAP و METTL14 وغيرها (الشكل 4A). حدد تحليل إثراء ميتا سكيب 13 مجموعة وظيفية ذات دلالة (P < 0.01، الحد الأدنى للعدد 3، عامل الإثراء > 1.5؛ الشكل 4B). كانت المجموعة الأعلى ترتيبا هي تنظيم الأيض mRNA (GO1903311، 22 جينا). شملت المجموعات الإضافية ذات الصلة بالسرطان إصلاح الديلكيليشن DNA (GO0006307)، ومعالجة بري-ميرنا (GO0031053)، وتثبيت التيلوميراز (GO1904356)، وغيرها. يتم توفير القائمة الكاملة لأسماء العناصر، والجينات المرتبطة، وإحصائيات الإثراء في الجدول التكميلي S2. علاوة على ذلك، كشفت النتائج عن ارتباطات إيجابية ذات دلالة كبيرة بين تعبير YTHDF3 وخلايا المناعة (جميعها P < 0.01) (الشكل التكميلي S6). لذا، قد يرتبط تنظيم YTHDF3 بعملية أيض mRNA، وإصلاح الحمض النووي، وصيانة التيلوميرات، وتسلل المناعة.
زيادة في التعبير عن mRNA ل YTHDF3 في سرطان الثدي
تم جمع أنسجة سرطان الثدي وأنسجة الثدي الطبيعية المجاورة المتطابقة من 20 مريضا خضعن لجراحة في قسم جراحة الثدي، المستشفى التابع لجامعة ساوثويست الطبية، بين يوليو 2023 وأكتوبر 2023. أظهر تحليل qRT-PCR لهذه العينات المزدوجة تعبيرا أعلى بشكل ملحوظ ل mRNA ل YTHDF3 في أنسجة الورم مقارنة بالأنسجة الطبيعية المجاورة (P = 0.001) (الشكل التكميلي S7 والجدول التكميلي S3).
توفر البيانات
جميع مجموعات البيانات التي تم تحليلها في هذه الدراسة متاحة للجمهور من المستودعات مفتوحة الوصول التالية. بيانات التعبير الجيني والسريرية: تم الحصول على بيانات تعبير RNA-seq لسرطان الثدي والمعلومات السريرية المقابلة من أطلس جينوم السرطان (TCGA-BRCA) عبر أطلس البروتين البشري (https://www.proteinatlas.org/). تم استرجاع بيانات إضافية عن تعبير أنسجة الثدي الطبيعية من مشروع التعبير الجيني للأنسجة (GTEx) (dbGaP accession phs000424.v8.p2) من خلال Breast Cancer Gene-Expression-Expression Miner v4.7 (http://bcgenex.ico.unicancer.fr/). تم إجراء التحقق من صحة البقاء باستخدام مخطط كابلان-ماير (https://kmplot.com). تم الحصول على بيانات تعبير البروتين والmRNA عبر UALCAN (http://ualcan.path.uab.edu/). التغيرات الجينية: تم الوصول إلى بيانات الطفرات الجسدية وتغيير أرقام النسخ لمجموعة بيانات سرطان الثدي الغازي (TCGA، مؤقتة، 1108 عينات) عبر cBioPortal (https://www.cbioportal.org/). مثيلة محفزات الحمض النووي: تم الحصول على بيانات المثيلة من MethHC (http://methhc.mbc.nctu.edu.tw/)، التي تحتوي على 839 عينة من سرطان الثدي وعناصر ضابطة طبيعية مترابطة جزئيا. تفاعل البروتين مع البروتين وإثراء المسار: تم إجراء تحليل الشبكات الوظيفية باستخدام STRING v12.0 (https://string-db.org/، درجة الثقة 0.4) وMetascape (http://metascape.org/). تم إجراء تحليل تسرب المناعة باستخدام مؤقت (TIMER) (https://cistrome.shinyapps.io/timer/). أي بيانات إضافية تقوم على هذه الأرقام متاحة من المؤلف المسؤول عند الطلب المعقول.
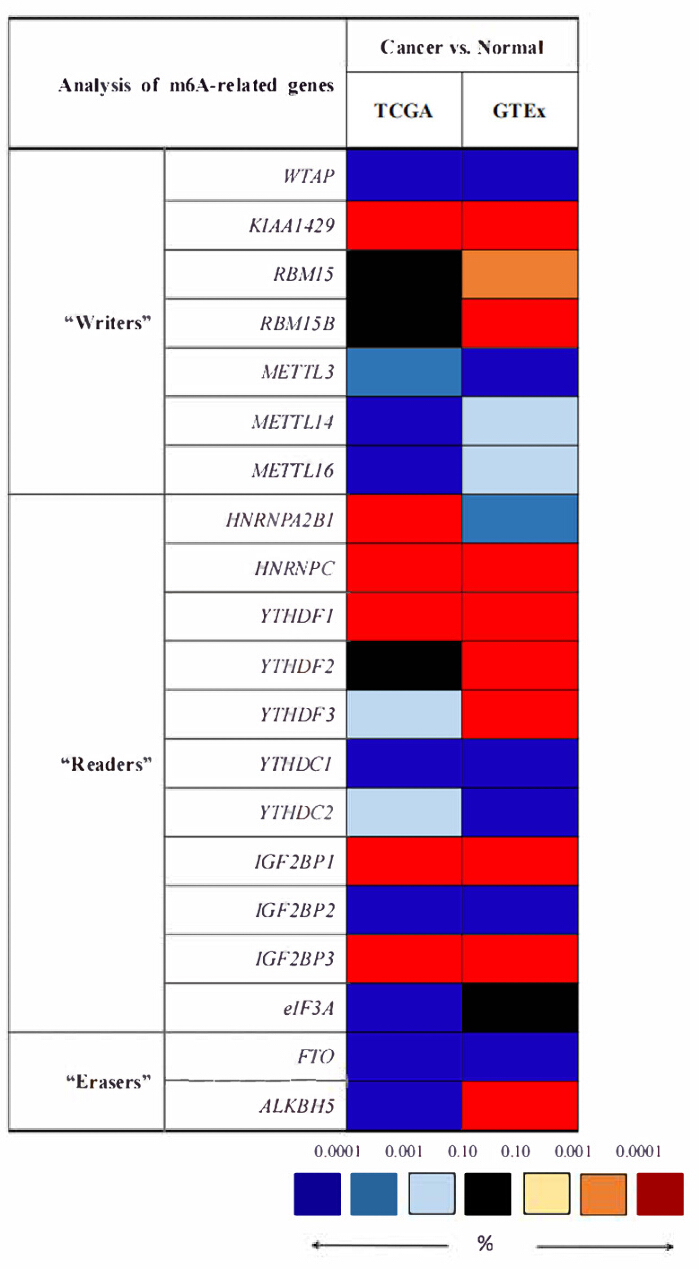
الشكل 1. التعبير التفاضلي عن mRNA لجينات N6-ميثيلادينوزين (m6A) في سرطان الثدي. الأحمر يشير إلى رفع التنظيم؛ الأزرق يشير إلى انخفاض التنظيم، والأسود إلى عدم وجود فرق في التعبير، والأبيض إلى عدم وجود بيانات تعبير جينية. يعكس ترميز الألوان دلالة إحصائية. تم استخدام اختبار دونيت-توكي-كرامر للمقارنات الزوجية. ملاحظة: "طبيعي" يشمل المقارنة بين الأورام وNATs في TCGA، وكذلك المقارنة بين الأورام والأنسجة السليمة في GTEx. الاختصارات: NATs = الأنسجة المجاورة الطبيعية؛ TCGA = أطلس جينوم السرطان؛ GTEx = تعبير النمط الجيني-الأنسجة. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
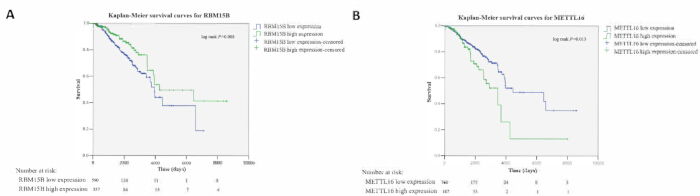
الشكل 2. العلاقة بين التعبير الشاذ عن mRNA لكتاب m6A RBM15B و METTL16 وبين البقاء بشكل عام لدى مرضى سرطان الثدي. (أ) كان انخفاض التعبير عن RBM15B مرتبطا ببقاء أقصر (اختبار التصنيف اللوغاريتمي، P = 0.008، <0.01); (ب) ارتبط ارتفاع التعبير عن METTL16 بتوقعات ضعيفة (اختبار الرتبة اللوغاريتمية، P = 0.013، <0.05). تم تقسيم المرضى إلى مجموعتين ذات تعبير عالي ومنخفض باستخدام القيمة القطعية المثلى. n = 947 (مجموعة TCGA-BRCA). تمثل المنحنيات الزرقاء والخضراء مجموعتي التعبير المنخفض والعالي على التوالي. وحدة تعبير mRNA كانت شظايا لكل كيلو قاعدة من النسخ لكل مليون قراءة مخرجة. الاختصار: TCGA-BRCA = أطلس جينوم السرطان لسرطان سرطان الثدي الغازي؛ m6A = N6-ميثيلادينوسين. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
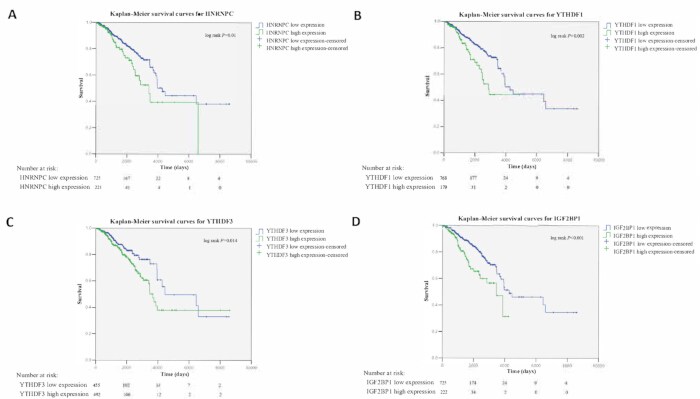
الشكل 3. العلاقة بين التعبير الشاذ عن mRNA ل"قراء" m6A مثل HNRNPC وYTHDF1 وYTHDF3 و IGF2BP1 مع البقاء الكلي لدى مرضى سرطان الثدي. (أ) ارتبط التعبير العالي عن mRNA في HNRNPC بانخفاض في البقاء على قيد الحياة بشكل عام (اختبار الترتيب-اللوغاريتمي، P = 0.01، <0.05). (B-D) كان التعبيرات العالية ل YTHDF1 وYTHDF3 و IGF2BP1 مرتبطة بشكل ملحوظ بتنبؤ أسوأ (اختبار التصنيف اللوغاريتمي، P = 0.002، P = 0.014، وP < 0.001 على التوالي). تم تقسيم المرضى إلى مجموعتين ذات تعبير عالي ومنخفض باستخدام القيمة القطعية المثلى. n = 947 (مجموعة TCGA-BRCA). تمثل المنحنيات الزرقاء والخضراء مجموعتي التعبير المنخفض والعالي على التوالي. وحدة تعبير mRNA للجين كانت شظايا لكل كيلو قاعدة من النسخ لكل مليون قراءة مأخوذة. الاختصارات: TCGA-BRCA = أطلس جينوم السرطان سرطان الثدي الغازي؛ m6A = N6-ميثيلادينوسين. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
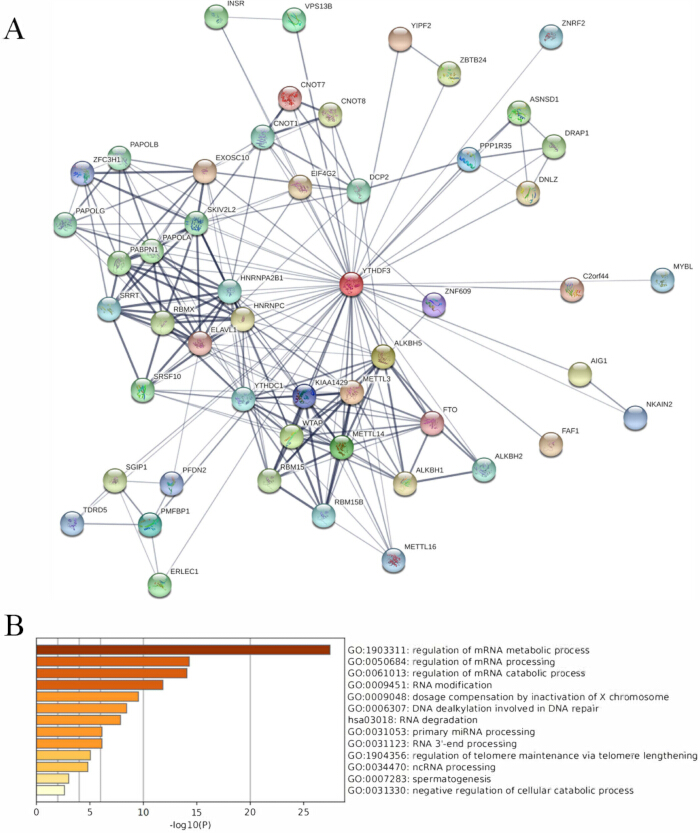
الشكل 4. شبكة التنظيم الجزيئي المحتملة ل YTHDF3. (أ) شبكة تفاعل البروتين التي تم بناؤها عن طريق الاستعلام عن قاعدة بيانات STRING باستخدام YTHDF3 كطعم (درجة الثقة ≥ 0.4، أقصى تفاعل بين المتفاعلين = 50). عرض الحواف يدل على قوة الأدلة الداعمة. (ب) حدد تحليل ميتا سكيب 13 مجموعة وظيفية مهمة (P < 0.01، الحد الأدنى للعدد = 3، عامل الإثراء > 1.5). شملت مصادر الأنطولوجيا موسوعة كيوتو لمسارات الجينات والجينومات وعمليات الأنطولوجيا الجينية البيولوجية. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
| المعايير | الموارد البشرية | 95٪ CI | قيمة p |
| YTHDF3 | 1.024 | 1.003-1.046 | 0.024 |
| العمر | 1.036 | 1.023-1.050 | <0.001 |
| السباق | 1.275 | 0.892-1.821 | 0.182 |
| المسرح | 2.263 | 1.796-2.851 | <0.001 |
الجدول 1: نتائج تحليل الانحدار متعدد المتغيرات للبقاء على قيد الحياة لجين YTHDF3 المرتبط ب m6A. الاختصارات: HR = نسبة المخاطر; 95٪ CI = فترة الثقة.
الشكل الإضافي S1. مستويات البروتين وmRNA في YTHDF3 في أنواع مختلفة من سرطان الثدي والأنسجة الطبيعية من مجموعات بيانات CPTAC وTCGA. التعبير البروتيني ل YTHDF3 في (أ) الأورام الأولية والأنسجة الطبيعية و(ب) الأنواع الفرعية لسرطان الثدي الغازي. تشير قيم Z إلى عدد الانحرافات المعيارية عن القيمة الوسيطة عبر العينات لنوع السرطان المقابل. تم تطبيع قيم نسبة العد الطيفي ل CPTAC log2 أولا داخل كل ملف عينة ثم عبر العينات. (ج) تعبير mRNA (تسلسل RNA، شظايا لكل كيلوبيس من النسخ لكل مليون قراءة مترجمة) ل YTHDF3 في أنواع فرعية مختلفة من سرطان الثدي الغازي. الاختصارات: CPTAC = اتحاد تحليل الأورام البروتيومية السريري؛ TCGA = أطلس جينوم السرطان. يرجى الضغط هنا لتحميل هذا الملف.
الشكل الإضافي S2. حالة مثيلة البروستر لجينات مرتبطة ب m6A تم استرجاعها من قاعدة بيانات MethHC. (أ) مثيلة المحرجة لكتاب m6A في سرطان الثدي وحالات الضوابط الطبيعية. (ب) مثيلة منشطة ل"ممحاة" m6A في سرطان الثدي والحالات الطبيعية للضبط. (C) مثيلة التروجين ل m6A "القراء" في سرطان الثدي والضوابط الطبيعية. أحمر، سرطان الثدي؛ الأخضر، التحكم العادي. *P < 0.05، **P < 0.005. الاختصار: m6A = N6-ميثيلادينوسين. يرجى الضغط هنا لتحميل هذا الملف.
الشكل الإضافي S3. تحلل التحولات الجينية وتغييرات عدد النسخ بواسطة cBioPortal ل"كتاب" و"ممحاة" m6A (TCGA، مؤقت، n = 1,108). (أ) تعديلات في "كتاب" m6A. (ب) التعديلات في "ممحايات" m6A. تشير مخططات الشريط إلى تكرار كل نوع من التعديلات: طفرات الإحساس الخاطئ، التضخيمات، الحذف العميق، والتعديلات المتعددة. فقط الجينات التي لديها معدل تغير ≥ 1٪ تظهر أيضا. يتم عرض التردد الكلي للتغير لكل جين على اليمين. الاختصارات: TCGA = أطلس جينوم السرطان؛ m6A = N6-ميثيلادينوسين. يرجى الضغط هنا لتحميل هذا الملف.
الشكل الإضافي S4. تحلل التحولات الجينية وتغييرات عدد النسخ بواسطة cBioPortal ل "قراء" m6A (TCGA، المؤقت، n = 1,108). تشير مخططات الشريط إلى تكرار كل نوع من التعديلات: طفرات الإحساس الخاطئ، التضخيمات، الحذف العميق، والتعديلات المتعددة. فقط الجينات التي لديها معدل تغير ≥ 1٪ تظهر أيضا. يتم عرض التردد الكلي للتغير لكل جين على اليمين. الاختصارات: TCGA = أطلس جينوم السرطان؛ m6A = N6-ميثيلادينوسين. يرجى الضغط هنا لتحميل هذا الملف.
الشكل الإضافي S5. ارتباط YTHDF3 مع بقاء مرضى سرطان الثدي في KMplotter. (أ) ارتبط تعبير mRNA مرتفع ل YTHDF3 بانخفاض في البقاء الكلي (P = 0.011، <0.05). (B-D) كان التعبير العالي ل YTHDF3 مرتبطا بشكل ملحوظ ببقاء أقل من التكرار، وبقاء بعيد بدون نقائل، وبقاء بعد التقدم (P = 1.9e-09، P = 0.06، و P = 0.029 على التوالي). تم حساب جميع قيم P بواسطة اختبار التصنيف اللوغاريتمي. عدد المرضى المعرضين للخطر موضح أسفل كل رسم بياني. كان القطع الأمثل يحدد بواسطة ميزة القطع الأفضل التي تختار تلقائيا في الأداة. الاختصار: KMplotter = مرسم كابلان-ماير. يرجى الضغط هنا لتحميل هذا الملف.
الشكل الإضافي S6. ارتباط تعبير YTHDF3 مع التسلل المناعي في سرطان الثدي. ارتبط تعبير YTHDF3 إيجابيا بمستويات التسلل في خلايا B، وخلايا CD4+ التائية، وخلايا CD8+ ، والبلاعميات، والعدلات، وDCs في مجموعة بيانات TIMER. تم استخدام نقاء الورم كمتغير في تحليل الارتباط الجزئي لسبيرمان. الاختصارات: DCs = الخلايا التغصنية؛ TIMER = مورد تقدير مناعة الورم. يرجى الضغط هنا لتحميل هذا الملف.
الشكل الإضافي S7. التحقق الكمي من تفاعل بوليميراز المتسلسل للتعبير عن YTHDF3 في 20 نسيج ثنائي من سرطان الثدي والأنسجة الطبيعية المجاورة. تم تطبيع مستويات mRNA في YTHDF3 إلى β-أكتين. تعرض البيانات كقيم 2⁻ΔΔCt. تم إجراء المقارنة الإحصائية باستخدام اختبار t ثنائي الذيل لطالب على قيمΔC t (P = 0.001). الاختصارات: NC = الأنسجة الطبيعية المتجاورة للثدي؛ BrCa = أنسجة سرطان الثدي. يرجى الضغط هنا لتحميل هذا الملف.
الجدول الإضافي S1. نتائج ملخصة لتحليل البقاء متعدد المتغيرات في الجينات المرتبطة ب m6A. الاختصارات: HR = نسبة المخاطر; 95٪ CI = فترة الثقة. يرجى الضغط هنا لتحميل هذا الملف.
الجدول الإضافي S2. نتائج التعليق والإثراء ل 13 جينا مرتبطا ب YTHDF3 بناء على Metascape.يرجى الضغط هنا لتحميل هذا الملف.
الجدول الإضافي S3. معلومات سريرية ل 20 عينة مزدوجة من سرطان الثدي.يرجى الضغط هنا لتحميل هذا الملف.
المناقشة
على الرغم من التحسينات العلاجية، لا يزال التشخيص المبكر والعلاج الشخصي لسرطان الثدي يمثل تحديا، مما يستلزم اكتشاف أهداف جزيئية جديدة21. دمجت هذه الدراسة بيانات متعددة الأوميكس لتوصيف الجينات المرتبطة ب m6A في سرطان الثدي. تظهر نتائجنا وجود اضطراب واسع النطاق في هذه الجينات، بشكل مستقل إلى حد كبير عن مثيلة المحفزات أو تضخيم الجينات، وتربط بين التعبير الشاذ لعدة جينات، خاصة YTHDF3، وسوء التشخيص. أكدنا أيضا زيادة تنظيم YTHDF3 في العينات السريرية وتنبؤنا مشاركته في المسارات المرتبطة بالسرطان.
يتم تركيب مثيلة m6A بواسطة مجمع "كاتب" يشمل WTAP و KIAA1429 وRBM15 وMETTL3 و METTL1422. على الرغم من أن WTAP مسبب للأورام في أورام خبيثة متنوعة23، 24، 25، فإن انخفاض تنظيمه في سرطان الثدي يعني وظائف تعتمد على السياق. KIAA1429 الزيادة تتوافق مع دوره المبلغ عنه في تنظيم CDK1 في سرطان الثدي25. تم زيادة تنظيم RBM15، المعروف بتأثيره على تتكون الدم والساركوما26,27، بينما ارتبط زيادة تنظيم RBM15B ببقاء أفضل، مما يتماشى مع ارتباطه الإيجابي مع BAP128. لوحظ آخرون 29,30 تقارير عن تثبيط LET-7g، على الرغم من تقارير تثبيط LET-7g، من قبل29,30. METTL14 خفض التنظيم يتوافق مع دوره في مثبط الأورام عبر تعديل m6A31. لا يزال METTL16 التعبير مثار جدل ويتطلب دراسة إضافية29,32.
فيما يتعلق ب "الممحاة"، تم تقليل تنظيم FTO في مجموعتنا، مشابها لبعض الدراسات المبنية على TCGA29، رغم أن التقارير المتباينة تشير إلى أنه يعزز التقدم عبر BNIP333. أظهر ALKBH5 تعبيرا متغيرا حسب مجموعة الضابطة، وقد تم الارتباط به في الحفاظ على جذوع سرطان الثدي تحت تأثير نقص الأكسجين34,35.
تتعرف "القراء" التي تحتوي على نطاق YTH على m6A، إلى جانب HNRNPC وHNRNPA2B1 36. تم رفع HNRNPA2B1 التنظيم، تماشيا مع دورها في إشارة STAT3/ERK1/2إلى 37.38. يتوافق تنظيم HNRNPC مع وظيفته في تنظيم استجابات الإنترفيرون الناتجة عن dsRNA39.
تظهر YTHDF1 وYTHDF2 دورين مزدوجين في أنواع مختلفة من السرطانات40,41. تشير الأدلة المتراكمة إلى تورط YTHDF3 في العمليات المسببة للأورمات: فهو يعزز سرطان الخلايا الكبدية عبر EGFR/STAT342، والورم الأرومي الدبقي عبر EGFR/ATK/ERK/p21 43، وانتشار سرطان عنق الرحم عن طريق إعادة البرمجة الأيضية44. كشفت دراستنا عن زيادة تنظيم YTHDF1 وYTHDF2 وYTHDF3 في سرطان الثدي مقارنة بالأنسجة السليمة، مع تأكيد زيادة في تنظيم YTHDF3 تجريبيا. وهذا يدعم المزيد من البحث في YTHDF3 في سرطان الثدي. تم تقليل تنظيم YTHDC1 وYTHDC2، رغم أن دراسات أخرى أبلغت عن أدوارهما النقيلة في سرطان بطانة الرحم والقولون45,46.
تعمل بروتينات IGF2BP أيضا كقارئ m6A47. يتماشى IGF2BP1 التنظيم مع دوره المعروف في دعم النمو المستنسخ48. تم تقليل IGF2BP2 التنظيم، ربما بسبب مثيلة المحفز، على عكس التقارير التي تتحدث عن دوره التكشي49. IGF2BP3 الزيادة تتوافق مع تعزيز تكاثرها عبر TRIM2550 والانتشار التعاوني مع IGF2BP2 في سرطان الثدي ثلاثي السلبيات51. تم اقتراح eIF3A، رغم أنه منخفض التنظيم هنا، كهدف علاجي52,53. تم الإبلاغ عن زيادة عدد النسخ في النسخة على أنها مرتبطة ب YTHDF1 وتعبير IGF2BP1 في سرطانات أخرى54. تعزز هذه النتائج أن اختلال تنظيم m6A منتشر في سرطان الثدي.
والأهم من ذلك، حددنا YTHDF3 كعامل تنبؤي مستقل، مؤكدا الدراسات الحديثة55، 56، 57، 58، 59. جينات m6A أخرى مثل FTO و IGF2BP3 تم ربطها أيضا بسوء التوقعات ومقاومة الكيمياء في سرطان الثدي 33,60,61.
أبرزت إثراء المسارات لدينا الأدوار المتوقعة ل YTHDF3 في استقلاب RNA62. والأهم من ذلك، أنه اقترح تورطا في إصلاح ديلكيليشن الحمض النووي عبر أفراد عائلة ALKBH63,64. علاوة على ذلك، تشير الروابط إلى معالجة pri-miRNA عبر HNRNPA2B1 وSRRT وMETTL3 65,66,67,68، بالإضافة إلى تثبيت التيلوميراز عبر EXOSC10 وDCP269، إلى آليات متعددة الأوجه محتملة. ومن المثير للاهتمام أن فرط التعبير عن YTHDF3 مرتبط بانتشار سرطان الثدي في الدماغ من خلال تعزيز ترجمة ST6GALNAC5 وGJA170. وسعت الدراسات الحديثة نطاق إنتاجه المسرطخ للأورام: فقد ثبت أن YTHDF3 يعزز التحلل السكري والتكاثر عبر محور mTOR-HIF1α-LDHA71؛ لتعزيز انتشار العظام العظمية عبر ترجمة ZEB1 وSMAD572 المعتمدة على m6A؛ في سرطان الثدي ثلاثي السلبية، يقوم YTHDF3 بتثبيت الحمض النووي الريبي الريبي لإنتاج الأورام 73؛ ويسهل الانتقال والانتقال بين الظهارة والميزانشيما من خلال تجنيد eIF4B لتحفيز ترجمة Notch274. بشكل مستمر، تبرز الدراسات الحديثة الشبكة التنظيمية الأوسع m6A في سرطان الثدي، بما في ذلك إعادة برمجة المثيلة بوساطة piR-1170/WTAP في نقائل الدماغ75 والتحلل المعتمد على POP1 والمعترف به في YTHDF2 لmRNA CDKN1A في TNBC76. تشير هذه الدراسات إلى أن YTHDF3 قد يكون متورطا في عمليات خبيثة متنوعة. لذا، قد يمثل YTHDF3 علامة حيوية تنبؤية واعدة، رغم أن الدراسات الميكانيكية الإضافية حول دوره في نمو سرطان الثدي، والموت المبرمج، والنقائل ضرورية.
ومن المثير للاهتمام أن تحليل TIMER أشار إلى وجود ارتباط إيجابي عام بين تعبير YTHDF3 ومستويات التسلل لعدة مجموعات من الخلايا المناعية في سرطان الثدي. الأساس البيولوجي لهذه الملاحظة غير معروف حاليا وقد يعكس تغيرا عاما في البيئة الدقيقة للورم في الأورام ذات المستوى العالي من YTHDF3. تتطلب دراسات مناعية ووظيفية مخصصة لتحليل الدور المحدد ل YTHDF3 في تشكيل المشهد المناعي لسرطان الثدي.
لهذه الدراسة عدة قيود. أولا، تعتمد التحليلات بشكل أساسي على مجموعات بيانات عامة؛ قد يؤدي دمج بيانات TCGA وGTEx إلى إدخال تأثيرات دفعية بسبب الاختلافات في معالجة العينات، ومنصات التسلسل، وخطوط التطبيع، كما أن الطبيعة الاستعادية لهذه قواعد البيانات تحمل تحيزات اختيار وتعليقات متأصلة. ثانيا، كانت مجموعة التحقق السريري صغيرة مع متابعة محدودة، ولم تدرج الجينات المرتبطة ب m6A المكتشفة حديثا. ثالثا، التحقق المستقل من قبل المجموعة لقيمة YTHDF3 التنبؤية مفقود، ولا تزال التناقضات بين mRNA وتعبير البروتين غير محلولة. علاوة على ذلك، لا توجد أدلة مباشرة في الجسم الحي أو في المختبر على الوظيفة البيولوجية ل YTHDF3 في سرطان الثدي، ولم تجر تحليلات حساسية للأدوية أو استجابة العلاج، ولم يتم استكشاف الآليات المحددة التي يتوسط بها YTHDF3 تعديل m6A على أهدافه اللاحقة. هذه التحفظات تستحق تفسيرا حذرا لنتائجنا. من الضروري إجراء دراسات مستقبلية مستقبلية مع بروتوكولات موحدة، وأحجام عينات أكبر، وتجارب وظيفية للتحقق من صحة YTHDF3 كمؤشر حيوي وتوضيح دوره الميكانيكي في سرطان الثدي.
في الختام، قيم هذا التحليل التكاملي بشكل شامل الجينات المرتبطة ب m6A في سرطان الثدي. بينما كان للتغيرات الجينية والفوق جينية تأثير محدود على التعبير الجيني، كانت الجينات غير منظمة بشكل عام ومرتبطة بالتوقعات المرضية. تشير نتائجنا إلى أن YTHDF3 قد يكون علامة بيولوجية تنبؤية مستقلة، مما يستدعي إجراء المزيد من التحقيق البيولوجي في سرطان الثدي.
الإفصاحات
المؤلفون لا يفرضون أي تضارب مصالح.
شكر وتقدير
تم تمويل هذا العمل من قبل مؤسسة العلوم الطبيعية في مقاطعة سيتشوان (رقم المنحة: 2022NSFSC1425)، ومشروع أبحاث الأورام الخاص بجمعية سيتشوان الطبية (رقم المنحة: 2024HR20)، ومشروع أبحاث جامعة الجنوب الغربي الطبية في لوتشو (رقم المنحة: 2024LZXNYDJ051)، ومؤسسة بكين شيسيكي لأبحاث الأورام السريرية (رقم المنحة: Y-SS2025MS-0009)، ومؤسسة تطوير الطب في بكين كيتشوانغ (رقم المنحة: KC2023-JX-0288-BM74).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| Breast Cancer Gene-Expression Miner v4.7 | وحدة علوم البيانات العُمرية لـ المركز المتكامل لأمراض الأورام | http://bcgenex.ico.unicancer.fr/ | يُستخدم لاسترجاع بيانات التعبير العادي للثدي من GTEx مدرجة في طرق/توافرة البيانات |
| cBioPortal | غير قابل للتطبيق | https://www.cbioportal.org/ | تحليل التغير الجيني وتغيير عدد النسخ؛ مدرجة في الطرق/ توافر البيانات |
| Consortium Clinical Proteomic Tumor Analysis (CPTAC) | Consortium Clinical Proteomic Tumor Analysis | غير قابل للتطبيق | مجموعة بيانات البروتينات المستخدمة عبر UALCAN؛ مدرجة في الطرق/توافرة البيانات |
| مشروع Genotype-Tissue Expression (GTEx) | GTEx Consortium | dbGaP accession phs000424.v8.p2 | مصدر بيانات التعبير العادي للثدي؛ مدرج في الطرق/توافرة البيانات |
| Hieff qPCR SYBR Green Master Mix (بدون Rox) | YEASEN | خليط أساسي qPCR؛ مدرج في مراجعة المؤلف | |
| Hifair III 1st Strand cDNA Synthesis SuperMix for qPCR | YEASEN | تخليق أول سلاسل cDNA؛ مدرج في مراجعة المؤلف | |
| Kaplan-Meier Plotter (KMplotter) | غير قابل للتطبيق | https://kmplot.com | أداة التحقق من البقاء على قيد الحياة عبر الإنترنت؛ مدرجة في الطرق/توافرة البيانات |
| Metascape | مدعوم بمنح NIH U19 AI106754 U19 AI135972 R01 DA03373 | http://metascape.org/ | تحليل توصيف الجينات وتخصيب المسارات؛ مدرج في الطرق/توافرة البيانات |
| MethHC | غير قابل للتطبيق | http://methhc.mbc.nctu.edu.tw/ | بيانات ميثيل الحمض النووي للمعزز/المصدر؛ مدرج في الطرق/توافرة البيانات |
| NanoDrop 2000 spectrophotometer | Thermo Fisher Scientific | قياس تركيز الحمض النووي الريبي النقي؛ مدرج في مراجعة المؤلف | |
| QuantStudio 7 Flex Real-Time PCR System | Applied Biosystems | PCR الكمي في الوقت الحقيقي؛ مدرج في مراجعة المؤلف | |
| SPSS 13.0 | لم يتم تقديمه في المخطوطة | الإصدار 13.0 | التحليلات الإحصائية؛ مدرج في مراجعة المؤلف |
| STRING v12.0 | STRING Consortium | https://string-db.org/ | تحليل شبكة تفاعل البروتينات؛ درجة ثقة 0.4؛ مدرج في الشكل 4/توافرة البيانات |
| The Cancer Genome Atlas (TCGA-BRCA) | The Cancer Genome Atlas | TCGA-BRCA | التعبير الجيني، البيانات السريرية، المصدر المصدر للتغيير الجيني / عدد النسخ ؛ مدرج في الطرق/توافرة البيانات |
| The Human Protein Atlas | The Human Protein Atlas | https://www.proteinatlas.org/ | المصدر المستخدم للحصول على التعبير RNA-seq للسرطان الثديي و البيانات السريرية؛ مدرج في الطرق/توافرة البيانات |
| TIMER | X Shirley Liu Lab | https://cistrome.shinyapps.io/timer/ | تحليل التسلل المناعي؛ مدرج في الطرق/توافرة البيانات |
| TRIzol reagent | Invitrogen | استخراج الحمض النووي الريبي؛ مدرج في مراجعة المؤلف | |
| UALCAN | جامعة ألاباما في برمنغهام | http://ualcan.path.uab.edu/ | تحليل تعبير البروتين و mRNA على أساس بيانات CPTAC و TCGA؛ مدرج في الطرق/توافرة البيانات |
المراجع
- Yeo SK, Guan JL. Breast cancer: multiple subtypes within a tumor? Trends Cancer. 2017;3(11):753-60.
- Sung H et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-49.
- Bennett RL, Licht JD. Targeting epigenetics in cancer. Annu Rev Pharmacol Toxicol. 2018;58:187-207.
- Wu L et al. Changes of N6-methyladenosine modulators promote breast cancer progression. BMC Cancer. 2019;19(1):326.
- Roignant JY, Soller M. m6A in mRNA: an ancient mechanism for fine-tuning gene expression. Trends Genet. 2017;33(6):380-90.
- Pan Y et al. Multiple functions of m6A RNA methylation in cancer. J Hematol Oncol. 2018;11(1):48.
- Uhlen M et al. Towards a knowledge-based Human Protein Atlas. Nat Biotechnol. 2010;28(12):1248-50.
- Győrffy B. Survival analysis across the entire transcriptome identifies biomarkers with the highest prognostic power in breast cancer. Comput Struct Biotechnol J. 2021;19:4101-9.
- Jézéquel P et al. bc-GenExMiner 4.5: new mining module computes breast cancer differential gene expression analyses. Database (Oxford). 2021;2021:baab007.
- GTEx Consortium. The GTEx Consortium atlas of genetic regulatory effects across human tissues. Science. 2020;369(6509):1318-30.
- Chandrashekar DS et al. UALCAN: an update to the integrated cancer data analysis platform. Neoplasia. 2022;25:18-27.
- Cerami E et al. The cBio cancer genomics portal: an open platform for exploring multidimensional cancer genomics data. Cancer Discov. 2012;2(5):401-4.
- Huang WY et al. MethHC: a database of DNA methylation and gene expression in human cancer. Nucleic Acids Res. 2015;43(Database issue):D856-61.
- Szklarczyk D et al. STRING v10: protein-protein interaction networks, integrated over the tree of life. Nucleic Acids Res. 2015;43(Database issue):D447-52.
- Zhou Y et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 2019;10(1):1523.
- Li T et al. TIMER: a web server for comprehensive analysis of tumor-infiltrating immune cells. Cancer Res. 2017;77(21):e108-10.
- Wang Y et al. Zinc finger and SCAN domain-containing 18 suppresses the proliferation, self-renewal, and drug resistance of glioblastoma cells. Heliyon. 2023;9(6):e17000.
- Cancer Genome Atlas Research Network. The Cancer Genome Atlas Pan-Cancer analysis project. Nat Genet. 2013;45(10):1113-20.
- Aran D et al. Comprehensive analysis of normal adjacent to tumor transcriptomes. Nat Commun. 2017;8(1):1077.
- Xiang TX et al. Aberrant promoter CpG methylation and its translational applications in breast cancer. Chin J Cancer. 2013;32(1):12-20.
- Pasculli B, Barbano R, Parrella P. Epigenetics of breast cancer: biology and clinical implication in the era of precision medicine. Semin Cancer Biol. 2018;51:22-35.
- Meyer KD, Jaffrey SR. Rethinking m6A readers, writers, and erasers. Annu Rev Cell Dev Biol. 2017;33:319-42.
- Jo HJ et al. WTAP regulates migration and invasion of cholangiocarcinoma cells. J Gastroenterol. 2013;48(11):1271-82.
- Chen Y et al. WTAP facilitates progression of hepatocellular carcinoma via m6A-HuR-dependent epigenetic silencing of ETS1. Mol Cancer. 2019;18(1):127.
- Qian JY et al. KIAA1429 acts as an oncogenic factor in breast cancer by regulating CDK1 in an N6-methyladenosine-independent manner. Oncogene. 2019;38(33):6123-41.
- Garcia-Dios DA et al. MED12, TERT promoter and RBM15 mutations in primary and recurrent phyllodes tumours. Br J Cancer. 2018;118(2):277-84.
- Hu M, Yang Y, Ji Z, Luo J. RBM15 functions in blood diseases. Curr Cancer Drug Targets. 2016;16(7):579-85.
- Shahriyari L, Abdel-Rahman M, Cebulla C. BAP1 expression is prognostic in breast and uveal melanoma but not colon cancer and is highly positively correlated with RBM15B and USP19. PLoS One. 2019;14(2):e0211507.
- Zhang B et al. Expression and prognostic characteristics of m6A RNA methylation regulators in breast cancer. Front Genet. 2020;11:604597.
- Cai X et al. HBXIP-elevated methyltransferase METTL3 promotes the progression of breast cancer via inhibiting tumor suppressor let-7g. Cancer Lett. 2018;415:11-9.
- Gu C et al. Mettl14 inhibits bladder TIC self-renewal and bladder tumorigenesis through N6-methyladenosine of Notch1. Mol Cancer. 2019;18(1):168.
- Yeon SY et al. Frameshift mutations in repeat sequences of ANK3, HACD4, TCP10L, TP53BP1, MFN1, LCMT2, RNMT, TRMT6, METTL8 and METTL16 genes in colon cancers. Pathol Oncol Res. 2018;24(3):617-22.
- Niu Y et al. RNA N6-methyladenosine demethylase FTO promotes breast tumor progression through inhibiting BNIP3. Mol Cancer. 2019;18(1):46.
- Zhang C et al. Hypoxia-inducible factors regulate pluripotency factor expression by ZNF217- and ALKBH5-mediated modulation of RNA methylation in breast cancer cells. Oncotarget. 2016;7(40):64527-42.
- Zhang C et al. Hypoxia induces the breast cancer stem cell phenotype by HIF-dependent and ALKBH5-mediated m6A-demethylation of NANOG mRNA. Proc Natl Acad Sci U S A. 2016;113(14):E2047-56.
- Liao S, Sun H, Xu C. YTH domain: a family of N6-methyladenosine (m6A) readers. Genomics Proteomics Bioinformatics. 2018;16(2):99-107.
- Alarcón CR et al. HNRNPA2B1 is a mediator of m6A-dependent nuclear RNA processing events. Cell. 2015;162(6):1299-308.
- Hu Y et al. Splicing factor hnRNPA2B1 contributes to tumorigenic potential of breast cancer cells through STAT3 and ERK1/2 signaling pathway. Tumour Biol. 2017;39(3):1010428317694318.
- Wu Y et al. Function of HNRNPC in breast cancer cells by controlling the dsRNA-induced interferon response. EMBO J. 2018;37(23):e99017.
- Nishizawa Y et al. Oncogene c-Myc promotes epitranscriptome m6A reader YTHDF1 expression in colorectal cancer. Oncotarget. 2018;9(7):7476-86.
- Zhong L et al. YTHDF2 suppresses cell proliferation and growth via destabilizing the EGFR mRNA in hepatocellular carcinoma. Cancer Lett. 2019;442:252-61.
- Hu B et al. m6A reader YTHDF3 triggers the progression of hepatocellular carcinoma through the YTHDF3/m6A-EGFR/STAT3 axis and EMT. Mol Carcinog. 2023;62(10):1599-614.
- Lee HH et al. YTHDF3 modulates EGFR/AKT/ERK/p21 signaling axis to promote cancer progression and osimertinib resistance of glioblastoma cells. Anticancer Res. 2023;43(12):5485-98.
- Zhong S et al. The inhibition of YTHDF3/m6A/LRP6 reprograms fatty acid metabolism and suppresses lymph node metastasis in cervical cancer. Int J Biol Sci. 2024;20(3):916-36.
- Zhang B et al. YT521 promotes metastases of endometrial cancer by differential splicing of vascular endothelial growth factor A. Tumour Biol. 2016;37(12):15543-9.
- Tanabe A et al. RNA helicase YTHDC2 promotes cancer metastasis via the enhancement of the efficiency by which HIF-1α mRNA is translated. Cancer Lett. 2016;376(1):34-42.
- Huang H et al. Recognition of RNA N6-methyladenosine by IGF2BP proteins enhances mRNA stability and translation. Nat Cell Biol. 2018;20(3):285-95.
- Fakhraldeen SA et al. Two isoforms of the RNA binding protein, coding region determinant-binding protein (CRD-BP/IGF2BP1), are expressed in breast epithelium and support clonogenic growth of breast tumor cells. J Biol Chem. 2015;290(21):13386-400.
- Li Y, Francia G, Zhang JY. p62/IMP2 stimulates cell migration and reduces cell adhesion in breast cancer. Oncotarget. 2015;6(32):32656-68.
- Wang Z et al. Blockade of miR-3614 maturation by IGF2BP3 increases TRIM25 expression and promotes breast cancer cell proliferation. EBioMedicine. 2019;41:357-69.
- Kim HY, Ha Thi HT, Hong S. IMP2 and IMP3 cooperate to promote the metastasis of triple-negative breast cancer through destabilization of progesterone receptor. Cancer Lett. 2018;415:30-9.
- Meyer KD et al. 5′ UTR m6A promotes cap-independent translation. Cell. 2015;163(4):999-1010.
- Yin JY et al. eIF3a: a new anticancer drug target in the eIF family. Cancer Lett. 2018;412:81-7.
- Bell JL et al. IGF2BP1 harbors prognostic significance by gene gain and diverse expression in neuroblastoma. J Clin Oncol. 2015;33(11):1285-93.
- Liu L et al. N6-methyladenosine-related genomic targets are altered in breast cancer tissue and associated with poor survival. J Cancer. 2019;10(22):5447-59.
- Anita R, Paramasivam A, Priyadharsini JV, Chitra S. The m6A readers YTHDF1 and YTHDF3 aberrations associated with metastasis and predict poor prognosis in breast cancer patients. Am J Cancer Res. 2020;10(8):2546-54.
- Zhao G et al. Gene signatures and cancer-immune phenotypes based on m6A regulators in breast cancer. Front Oncol. 2021;11:756412.
- Demircan T, Yavuz M, Akgul S. m6A pathway regulators are frequently mutated in breast invasive carcinoma and may play an important role in disease pathogenesis. OMICS. 2021;25(10):660-78.
- Lv W et al. Analysis and validation of m6A regulatory network: a novel circBACH2/hsa-miR-944/HNRNPC axis in breast cancer progression. J Transl Med. 2021;19(1):527.
- Ohashi R et al. IMP3 contributes to poor prognosis of patients with metaplastic breast carcinoma: a clinicopathological study. Ann Diagn Pathol. 2017;31:30-5.
- Ohashi R et al. Prognostic value of IMP3 expression as a determinant of chemosensitivity in triple-negative breast cancer. Pathol Res Pract. 2017;213(9):1160-5.
- Chen XY, Zhang J, Zhu JS. The role of m6A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Drabløs F et al. Alkylation damage in DNA and RNA: repair mechanisms and medical significance. DNA Repair (Amst). 2004;3(11):1389-407.
- Fedeles BI et al. The AlkB family of Fe(II)/α-ketoglutarate-dependent dioxygenases: repairing nucleic acid alkylation damage and beyond. J Biol Chem. 2015;290(34):20734-42.
- Villarroya-Beltri C et al. Sumoylated hnRNPA2B1 controls the sorting of miRNAs into exosomes through binding to specific motifs. Nat Commun. 2013;4:2980.
- Hu X et al. Depletion of Ars2 inhibits cell proliferation and leukemogenesis in acute myeloid leukemia by modulating the miR-6734-3p/p27 axis. Leukemia. 2019;33(5):1090-101.
- Chen Y et al. Ars2 promotes cell proliferation and tumorigenicity in glioblastoma through regulating miR-6798-3p. Sci Rep. 2018;8(1):15602.
- Alarcón CR et al. N6-methyladenosine marks primary microRNAs for processing. Nature. 2015;519(7544):482-5.
- Shukla S et al. Inhibition of telomerase RNA decay rescues telomerase deficiency caused by dyskerin or PARN defects. Nat Struct Mol Biol. 2016;23(4):286-92.
- Chang G et al. YTHDF3 induces the translation of m6A-enriched gene transcripts to promote breast cancer brain metastasis. Cancer Cell. 2020;38(6):857-71.e7.
- Liu Z et al. YTHDF3 mediates the occurrence and development of breast cancer by regulating glycolysis through the mTOR-HIF1α-LDHA axis. J Cell Mol Med. 2026;30(9):e71105.
- Xu L et al. YTHDF3 promotes breast cancer osteolytic bone metastasis by enhancing the translation of ZEB1 and SMAD5. Oncogenesis. 2025;14(1):41.
- Zhang Y, Chen S, Wu Q. The m6A reader YTHDF3 promotes TNBC progression by regulating CENPI stabilization. Front Oncol. 2025;15:1546723.
- Chen H et al. YTHDF3 drives tumor growth and metastasis by recruiting eIF4B to promote Notch2 translation in breast cancer. Cancer Lett. 2025;614:217534.
- Luo Y et al. piR-1170 drives brain metastasis and immune evasion via WTAP-mediated m6A methylation reprogramming in triple-negative breast cancer. Mol Cancer. 2026;25(1):52.
- Zhang C et al. POP1 facilitates proliferation in triple-negative breast cancer via m6A-dependent degradation of CDKN1A mRNA. Research (Wash D C). 2024;7:0472.