يصف هذا البروتوكول مناهج مخبرية (in vitro) وحيوية (in vivo) لاستقصاء كيفية تأثير N-lactoyl-phenylalanine على اعتلال عضلة القلب السكري، واستقلاب الدهون في القلب، وتخليق الكوليسترول، مع التركيز على مسار adenosine monophosphate-activated protein kinase alpha 1/3-hydroxy-3-methylglutaryl-coenzyme A reductase.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة بحثية
يعمل N-Lactoyl-phenylalanine على تحسين الوظيفة القلبية في نموذج فأر لمرض اعتلال عضلة القلب السكري من خلال تنظيم استقلاب الدهون
في هذه المقالة
ملخص
الملخص
يُعد اعتلال عضلة القلب السكري (DCM) أحد أخطر مضاعفات مرض السكري. ويمكن لـ N-lactoyl-phenylalanine (Lac-Phe)، وهو مستقيل داخلي المنشأ، أن يعزز فقدان الوزن ويحسن توازن الجلوكوز. سعت هذه الدراسة إلى استقصاء التأثير العلاجي لـ Lac-Phe على اعتلال عضلة القلب السكري واستكشاف الآلية الكامنة وراء ذلك بشكل أكبر. تم علاج فئران مصابة بمرض السكري من النوع 2 مع اعتلال عضلة القلب السكري باستخدام Lac-Phe. وقد أدى Lac-Phe إلى تعزيز الوظيفة الانقباضية للقلب، وتحسين إعادة التشكيل المرضي، وتقليل تراكم الدهون في القلب. وفي المختبر، تم استقصاء تأثيرات Lac-Phe في خلايا H9c2 المحفزة بالجلوكوز العالي وحمض البالمتيك. وقد قلل Lac-Phe من تراكم الدهون عن طريق خفض تخليق الكوليسترول في خلايا H9c2. ومن الناحية الميكانيكية، عزز Lac-Phe فسفرة وتنشيط بروتين كيناز المعتمد على أدينوسين أحادي الفوسفات ألفا 1 (AMPKα1). وبناءً على ذلك، قام AMPKα1 المنشط بفسفرة وتثبيط هدفه المصب، وهو مختزل 3-هيدروكسي-3-ميثيل جلوتاريل-مرافق الإنزيم أ (HMGCR)، مما أدى إلى تقليل تخليق الكوليسترول وبالتالي تحسين اختلال استقلاب الدهون في خلايا H9c2. وتشير هذه النتائج إلى أن Lac-Phe يحسن استقلاب الدهون في خلايا H9c2 في حالات اعتلال عضلة القلب السكري عبر مسار AMPKα1/HMGCR، مما يؤدي إلى تعزيز الوظيفة الانقباضية للقلب وتحسين إعادة التشكيل المرضي. قد يمثل Lac-Phe نهجاً علاجياً محتملاً لاعتلال عضلة القلب السكري.
المقدمة
يُعد داء السكري مرضاً أيضياً يتميز بارتفاع مستمر في مستوى سكر الدم (hyperglycemia)1. وخلال العقدين الماضيين، أصبح السكري أحد أهم عشرة أسباب للوفاة في جميع أنحاء العالم، حيث يتوفى أكثر من ستة ملايين شخص سنوياً بسبب السكري ومضاعفاته2. ويمثل اعتلال عضلة القلب السكري (DCM)، وهو حالة مرضية قلبية ناتجة عن داء السكري، أحد أخطر المضاعفات المرتبطة بهذا المرض3,4. وهو يعمل كعامل خطر مستقل للإصابة بفشل القلب، ويتميز بتغيرات هيكلية ووظيفية في عضلة القلب5,6، بما في ذلك تليف القلب وتضخم الخلايا العضلية القلبية، مما يؤدي في النهاية إلى خلل وظيفي في كل من الانبساط والانقباض. وعلى الرغم من استخدام العديد من العلاجات القلبية الوعائية التقليدية حالياً في إدارة اعتلال عضلة القلب السكري، مثل حاصرات β، ومثبطات الإنزيم المحول للأنجيوتنسين، وحاصرات مستقبلات الأنجيوتنسين II من النوع 17,8، إلا أن فعاليتها تظل دون المستوى الأمثل في الإعدادات السريرية. ونظراً لأن الآليات الكامنة وراء اعتلال عضلة القلب السكري لم تُدرس بشكل وافٍ9، فلا توجد حالياً استراتيجية علاجية واضحة تستهدف هذا المرض10,11. وتتطور المظاهر السريرية لاعتلال عضلة القلب السكري من خلل وظيفي انبساطي بدون أعراض في المرحلة المبكرة إلى خلل وظيفي انقباضي وفشل قلبي سريري في المرحلة المتأخرة، وصولاً إلى الوفاة12,13. لذا، هناك حاجة ملحة لاستكشاف وتطوير خيارات علاجية فعالة لهذه الحالة.
يُعد اختلال استقلاب الدهون سمة رئيسية لمرض اعتلال عضلة القلب التوسعي (DCM)14. ففي حالات DCM، يمكن أن تؤدي زيادة مستويات الأحماض الدهنية الحرة (FFAs) في الدم إلى امتصاص مفرط للأحماض الدهنية من قِبل الخلايا العضلية القلبية15,16. ويعتمد استقلاب الأحماض الدهنية في الخلايا العضلية القلبية بشكل أساسي على أكسدة الأحماض الدهنية. ومع مرور الوقت، تصبح عملية أكسدة الأحماض الدهنية في الخلايا العضلية القلبية غير كافية لاستقلاب جميع الأحماض الدهنية الممتصة بشكل كامل، مما يؤدي إلى تراكم الأحماض الدهنية الزائدة ونواتج استقلابها الوسيطة في الخلايا العضلية القلبية17. ويحفز هذا الحمل الدهني المفرط حدوث السمية الدهنية، ويعطل إمدادات الطاقة في عضلة القلب، ويعزز الإجهاد التأكسدي والاستجابات الالتهابية القلبية، مما يتسبب في النهاية في إلحاق ضرر جسيم بالخلايا العضلية القلبية18,19. وبناءً على ذلك، قد يمثل التنظيم النشط لاستقلاب الدهون في القلب هدفاً علاجياً محتملاً لمرض DCM20.
يُعد N-lactoyl-phenylalanine (Lac-Phe) مستقلاً أيضياً داخلي المنشأ يرتفع تركيزه بسرعة بعد ممارسة التمارين الرياضية21. ومن الناحية الميكانيكية، يتم تصنيع Lac-Phe بواسطة إنزيم carnosine dipeptidase 2 (CNDP2) السيتوبلازمي من خلال تكثيف اللاكتات والفينيل ألانين. وينتشر مسار التصنيع الحيوي هذا على نطاق واسع في أنواع مختلفة من الخلايا، بما في ذلك البلعميات، والخلايا الظهارية، والخلايا الجذعية الميزنكيمية، والتي تفرز Lac-Phe في الدورة الدموية بعد النشاط البدني22. وقد تبين أن الإعطاء المزمن لـ Lac-Phe يقلل بشكل فعال من تناول الطعام، ويخفض السمنة ووزن الجسم، ويحسن التوازن الداخلي للجلوكوز21. كما أظهرت دراسة حديثة أن Lac-Phe يمكن أن يحسن قدرة استقلاب الدهون في الخلايا الدبقية الصغيرة/البلعميات بعد إصابة الحبل الشوكي23. ومن المثير للاهتمام أن الدراسات تشير إلى أن الإعطاء الحاد والمزمن للميتفورمين، وهو دواء الخط الأول لعلاج السكري من النوع 2، يمكن أن يرفع مستويات Lac-Phe، وأن Lac-Phe يتوسط التأثيرات المضادة للسمنة للميتفورمين22. علاوة على ذلك، أثبت Sha وزملاؤه مؤخراً أن Lac-Phe يقلل من موت خلايا عضلة القلب عن طريق تخفيف خلل الميتوكوندريا، مما يؤدي إلى تحسين فشل القلب الناجم عن تضيق الأبهر المستعرض (TAC)24. ويعد فرط سكر الدم المزمن والسمنة من العوامل المهمة التي تساهم في خلل استقلاب الدهون في DCM25. وبشكل جماعي، تشير هذه الأدلة إلى أن Lac-Phe قد يكون له تأثير علاجي محتمل على DCM. ومع ذلك، لم يتم حتى الآن بحث دور Lac-Phe تحديداً في حالة DCM.
وجدنا في هذه الدراسة أن الإعطاء الخارجي لـ Lac-Phe للفئران المصابة باعتلال عضلة القلب السكري أدى إلى تحسين الوظيفة الانقباضية للقلب بفعالية وتخفيف إعادة تشكيل القلب المرضية. كما وجدنا أن Lac-Phe حسن وظائف القلب في الفئران المصابة بـ DCM من خلال تنظيم خلل استقلاب الدهون؛ حيث قلل Lac-Phe من تراكم القطيرات الدهنية (LD) في الخلايا العضلية القلبية للفئران المصابة بـ DCM وخفض محتوى الكوليسترول في القلب. أما من الناحية الميكانيكية، فقد حفز Lac-Phe فسفرة وتنشيط بروتين كيناز المعتمد على أدينوسين أحادي الفوسفات ألفا 1 (AMPKα1)، مما أدى بدوره إلى تعزيز فسفرة مختزل 3-هيدروكسي-3-ميثيل غلوتاريل مرافق الإنزيم أ (HMGCR). وتعمل فسفرة HMGCR على تقليل نشاطه، مما يؤدي إلى انخفاض إنتاج الكوليسترول وبالتالي تحسين خلل استقلاب الدهون في الخلايا العضلية القلبية. توفر هذه النتائج أساساً نظرياً للعلاج المحتمل لـ DCM باستخدام Lac-Phe.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
تمت الموافقة على بروتوكول الدراسة الحيوانية من قبل لجنة الأخلاقيات المؤسسية في مستشفى برج الطبول بنانجينغ (رقم الموافقة: 2025AE1065، 26 سبتمبر 2025)، وأُجريت الدراسة وفقاً للإرشادات الموضحة في إرشادات رعاية واستخدام حيوانات المختبر (الطبعة الثامنة)، الصادرة عن المعاهد الوطنية للصحة في الولايات المتحدة.
الحيوانات
استُخدم في هذه الدراسة ثلاثون فأراً من ذكور سلالة C57BL/6J تبلغ من العمر 5 أسابيع. وبعد أسبوع واحد من التغذية التكيفية، وُضعت جميع الفئران في مساكن مع إتاحة الوصول إلى الغذاء والماء تحت دورة نهارية-ليلية متبادلة مدتها 12 ساعة في درجة حرارة تبلغ 22°C ± 2°C ورطوبة تتراوح بين 40% و60%. واستُخدم نظام غذائي عالي الدهون (HFD) مقترناً بجرعة منخفضة من الستريبتوزوتوسين (STZ) لإنشاء نموذج فأر مصاب باعتلال عضلة القلب السكري (DCM) (الشكل 1أبعد أربعة أسابيع من بدء التغذية بنظام غذائي عالي الدهون (HFD؛ 60% دهون، 20% بروتين، و20% كربوهيدرات)، صيمت الفئران طوال الليل، ثم حُقنت لاحقاً بمادة الستربتوزوتوسين (STZ؛ بتركيز 8 مجم/مل مذابة في محلول سترات المنظم، بأس هيدروجيني pH 4.5) عبر الحقن داخل الصفاق بجرعة 35 مجم/كجم/يوم لمدة ثلاثة أيام متتالية. أما فئران مجموعة الضبط، فقد غُذيت بنظام غذائي ضابط (10% دهون، 20% بروتين، و70% كربوهيدرات) وتلقت أحجاماً مكافئة من محلول سترات المنظم. وبعد 15 أسبوعاً إضافية من الاستمرار في النظام الغذائي عالي الدهون، تم اختيار الفئران التي استوفت كلا المعيارين: مستوى جلوكوز الدم العشوائي ≥13.3 مليمول/لتر، والكسر القذفي للبطين الأيسر (LVEF) البالغ <اعتُبرت الفئران التي بلغت نسبة كسر القذف لديها 55% نماذج ناجحة لمرض اعتلال عضلة القلب التوسعي (DCM). ورُقمت هذه الفئران التي تم التحقق من إصابتها بـ DCM، ثم وُزعت عشوائياً على مجموعتي DCM ومجموعة DCM + Lac-Phe باستخدام جدول أرقام عشوائي. وقد فشلت نصف الفئران تقريباً في تطوير النموذج؛ لذا تم قتل هذه الحيوانات رحيماً وفقاً لمتطلبات أخلاقيات التعامل مع الحيوانات. وباختصار، قُسمت الفئران إلى ثلاث مجموعات: مجموعة ضابطة (Control)، ومجموعة DCM، ومجموعة DCM + Lac-Phe (بحيث بلغ عدد الفئران 10 في كل مجموعة). خضعت جميع الفئران العشر في كل مجموعة لتخطيط صدى القلب، وقياس وزن الجسم، واختبار تحمل الجلوكوز الفموي (OGTT). وبعد فترة علاج استمرت 28 يوماً، جُمعت القلوب لإجراء التحاليل اللاحقة. كان هناك 10 فئران في كل مجموعة؛ استُخدم ثلاثة فئران من كل مجموعة لتسلسل الترانسكريبتوم، وثلاثة للمجهر الإلكتروني النافذ والتلوين النسيجي، وثلاثة لتحليل التعبير البروتيني، بينما خُصص الفأر المتبقي في كل مجموعة كاحتياطي. وبعد التأسيس الناجح لنموذج DCM، أُذيب Lac-Phe في محلول ملحي طبي بتركيز نهائي قدره 10 مجم/مل. وتلقت الفئران في مجموعة DCM + Lac-Phe عقار Lac-Phe عن طريق الحقن داخل الصفاق بجرعة 50 مجم/كجم/يوم، وبحجم حقن قدره 5 مل/كجم، مرة واحدة يومياً لمدة 28 يوماً متتالية. بينما حُقنت الفئران في المجموعتين الضابطة وDCM بحجم مكافئ من المحلول الملحي الطبي كعنصر تحكم ناقل.
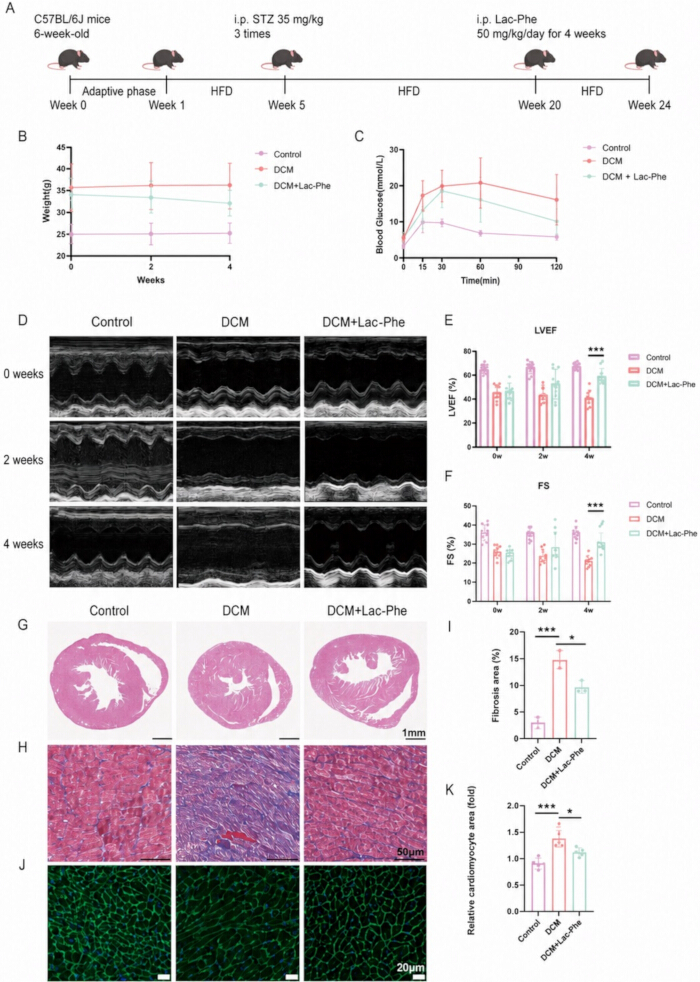
الشكل 1يُحسن Lac-Phe الوظائف القلبية وإعادة التشكيل المرضي لدى الفئران المصابة باعتلال عضلة القلب السكري. (أ) مخطط تخطيطي لنموذج فأر مصاب باعتلال عضلة القلب السكري (DCM) المستحث بواسطة النظام الغذائي عالي الدهون (HFD) والستريبتوزوتوسين (STZ)، وبروتوكول العلاج بـ Lac-Phe. (ب) أوزان أجسام الفئران في مجموعات المجموعة الضابطة (Control)، وDCM، وDCM + Lac-Phe خلال فترة العلاج التي استمرت 4 أسابيع؛ العدد = 10 لكل مجموعة. (ج) اختبار تحمل الجلوكوز الفموي (OGTT) في المجموعات المحددة؛ العدد = 10 لكل مجموعة. (د) صور تخطيط صدى القلب ممثلة عند الأسبوع 0 و2 و4 من العلاج. (هـ، و) قياس كمي للكسر القذفي للبطين الأيسر (LVEF) (هـ) والتقصير الجزئي (FS) (و)؛ العدد = 10 لكل مجموعة. (ز) صور ممثلة لصبغة الهيماتوكسيلين والإيوسين (H&E)&مقاطع من القلب مصبوغة بـ (E). شريط المقياس = 1 مم. (H,I) صبغة ماسون ثلاثية الألوان نموذجية لمقاطع من القلب (H) وقياس كمي للمنطقة الليفية (I)؛ العدد = 3 لكل مجموعة. شريط المقياس = 50 μm(J, K) صبغ تمثيلي بـ wheat germ agglutinin (WGA) لقطاعات من القلب (J) وتقدير كمي للمساحة النسبية للخلايا العضلية القلبية (K)؛ العدد = 3 لكل مجموعة. شريط المقياس = 20 μmتُعرض البيانات في صورة المتوسط الحسابي ± الانحراف المعياري. P < 0.05, **P < 0.001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الوظيفة القلبية
بعد التخدير باستنشاق isoflurane، تم تثبيت الفئران في وضع الاستلقاء الظهري على منصة يتم التحكم في درجة حرارتها (37°C). وقِيست أبعاد البطين الأيسر وسرعة تدفق الدم في الصمام المترالي خلال فترتي الانبساط والانقباض باستخدام جهاز تخطيط صدى القلب مجهز بمحول طاقة بتردد 40 MHz، والتي حُسب من خلالها الكسر القذفي للبطين الأيسر LVEF وكسر التقصير (FS). كما جُمعت ثلاث دورات قلبية متتالية من كل فأر.
معالجة الخلايا
تم استزراع خلايا H9c2 في وسط Dulbecco’s modified Eagle’s المكمل بـ 10% من مصل البقر الجنيني و 1% من البنسلين-ستربتوميسين عند درجة حرارة 37°C في جو رطب يحتوي على 5% CO₂. تم تمرير الخلايا كل 2–3 أيام عند وصولها إلى درجة تلاقي تتراوح بين 70%–80%. ولإجراء التجارب، تم استزراع الخلايا في أطباق بقطر 10 cm ثم تقسيمها إلى ثلاث مجموعات: مجموعة ضابطة، ومجموعة الجلوكوز العالي/حمض البالمتيك (HG/PA)، ومجموعة HG/PA + Lac-Phe. تعرضت الخلايا في مجموعتي HG/PA و HG/PA + Lac-Phe أولاً لـ 0.25 mM من حمض البالمتيك و 50 mM من الجلوكوز لمدة 24 h. بعد ذلك، عولجت الخلايا في مجموعة HG/PA + Lac-Phe بـ 10 μg/mL من Lac-Phe لمدة 24 h إضافية مع الاستمرار في التعريض لـ HG/PA؛ بينما تلقت الخلايا في مجموعة HG/PA حجماً مكافئاً من PBS تحت نفس ظروف HG/PA. وفي تجارب تثبيط p-AMPK، تم إضافة 10 μM من AMPK-IN-3 (المذاب في DMSO) بالتزامن مع Lac-Phe لمدة 24 h، وتلقت مجموعات الضبط المقابلة حجماً متساوياً من DMSO. أما في تجارب الأتورفاستاتين (atorvastatin)، فقد عولجت خلايا H9c2 تحت ظروف HG/PA بـ 10 μM من atorvastatin لمدة 24 h، إما بمفرده أو بالاشتراك مع 10 μg/mL من Lac-Phe.
التصبيغ النسيجي
بعد 28 يوماً من إعطاء Lac-Phe، تم استئصال قلوب الفئران وتثبيتها بالغمر في 4% paraformaldehyde (pH 7.4) لمدة 24 h. تم طمر أنسجة القلب المثبتة في البارافين وتقطيعها إلى شرائح بسمك 6-μm. صُبغت مقاطع الأنسجة بصبغات hematoxylin and eosin، وwheat germ agglutinin، وMasson’s trichrome. نُفذت جميع إجراءات الصبغ بدقة وفقاً لبروتوكولات الشركات المصنعة. أُجري التصوير الشامل للشريحة (Whole-slide imaging) بتكبير 20× باستخدام مجهر حقل مضيء عالي الدقة مجهز بنظام كاميرا رقمية.
تحليل لطخة ويسترن
تم تحديد تركيز البروتين باستخدام مقايسة Bradford. فُصلت نواتج تحلل الأنسجة بواسطة SDS-PAGE على هلام أكريلاميد بتركيز 10% (w/v)، ونُقلت كهربائياً إلى أغشية polyvinylidene difluoride. تم حجب مواقع الارتباط غير النوعية باستخدام 5% من bovine serum albumin لمدة 2 h في درجة حرارة الغرفة. بعد ذلك، حُضنت الأغشية طوال الليل عند 4°C مع أجسام مضادة أولية (مخففة بنسبة 1:1,000)، تلتها ست عمليات غسيل بمحلول TBST (مدة كل منها 5 min) على جهاز هزاز. ثم حُضنت الأغشية مع أجسام مضادة ثانوية مقترنة بـ horseradish peroxidase (مخففة بنسبة 1:5,000) لمدة 2 h في درجة حرارة الغرفة، تلتها ست عمليات غسيل أخرى بمحلول TBST (مدة كل منها 5 min). تم إظهار حزم البروتين باستخدام مجموعة كواشف التألق الكيميائي المعزز. وأُجري التكميم لنتائج western blot عن طريق تحليل كثافة النطاقات باستخدام برنامج ImageJ. جميع الأجسام المضادة المستخدمة في هذه الدراسة مدرجة في جدول المواد.
علم النسخ (Transcriptomics)
تم عزل الحمض النووي الريبوزي الكلي (Total RNA) من أنسجة قلب فئران من سلالة C57BL/6J باستخدام كاشف TRIzol ومجموعات RNeasy mini. وتم تقييم جودة الـ RNA باستخدام جهاز 2100 bioanalyzer، مما أظهر نقاءً وسلامةً عالية للـ RNA. كما جُهزت مكتبات تسلسل الـ RNA (RNA-seq libraries) وفقاً لدليل مجموعة VAHTS Universal V10 RNA-seq Library Prep Kit، وتم تسلسلها باستخدام نظام Illumina NovaSeq 6000 (قراءة فردية، 150 زوجاً قاعدياً). وحددت الجينات ذات التعبير التفاضلي باستخدام برنامج DESeq2، مع قيمة معدلة P قيمة < 0.05 ولوغاريتم مطلق₂ معدل التغير > تُعتبر القيمة 1 ذات دلالة إحصائية. أُجري تحليل إثراء الوجود الجيني (GO) على الجينات ذات التعبير المتباين، وحُسبت دلالة إثراء الجينات ذات التعبير المتباين في مصطلحات الوجود الجيني باستخدام خوارزمية التوزيع الهندسي الفائق.
تلوين Oil Red O وتلوين الدهون بـ LD540
تم طمر أنسجة القلب في مركب OCT ثم قُطعت إلى مقاطع بسمك 10-μm. تُرِكت المقاطع المجمدة لتصل إلى درجة حرارة الغرفة لمدة 30 دقيقة، ثم ثُبِّتت باستخدام 4% paraformaldehyde لمدة 10 دقائق. وبعد الغسل بمحلول PBS، وُضعت المقاطع في كحول isopropyl بنسبة 60% لمدة 15 ثانية، ثم غُطيت بمحلول العمل Oil Red O لمدة 30 دقيقة. بعد ذلك، عولجت المقاطع بكحول isopropyl بنسبة 60% لمدة 15 ثانية وغُسلت ثلاث مرات بمحلول PBS. أما بالنسبة لصبغ الدهون باستخدام LD540، فقد غُسلت خلايا H9c2 بمحلول PBS وثُبِّتت باستخدام 4% paraformaldehyde لمدة 10 دقائق في درجة حرارة الغرفة. ثم حُضنت الخلايا مع 10 μM من LD540 لمدة 30 دقيقة في درجة حرارة الغرفة.
المجهر الإلكتروني النافذ (TEM)
قُطعت أنسجة قلب الفأر الطازجة إلى قطع بحجم 1–2 mm3، وثُبّتت في محلول تثبيت للمجهر الإلكتروني عند درجة حرارة 4°C لمدة 4 h، ثم غُسلت بالماء المقطر مرتين وغُمرت في محاليل إيثانول ذات تركيزات تزداد تدريجيًا. بعد ذلك، تم طمر العينات وتقطيعها إلى شرائح، ثم فحصها باستخدام المجهر الإلكتروني النافذ.
محتوى الكوليسترول الكلي (TC)
تم قياس مستويات الكوليسترول الكلي (TC) في عينات المصل وخلايا H9c2 باستخدام طقم فحص Amplex Red Cholesterol and Cholesteryl Ester Assay Kit وفقاً لتعليمات الشركة المصنعة.
اختبار تحمل الجلوكوز الفموي (OGTT)
صِيمت الفئران لمدة 14 h (من الساعة 19:00 إلى 9:00) ثم أُعطيت الجلوكوز عن طريق التغذية الأنبوبية (محلول مخزن بتركيز 20%، بجرعة 2 g/kg). تم تحديد مستويات جلوكوز الدم باستخدام عينات دم جُمعت من الوريد الذيلي عند الدقائق 0 و15 و30 و60 و120 بعد التغذية الأنبوبية.
قياس مجموعة عد الخلايا-8 (CCK-8)
استُخدم اختبار CCK-8 لقياس حيوية الخلايا. حيث زُرعت خلايا H9c2 في أطباق ذات 96 بئراً بكثافة أولية بلغت 3 × 10⁴ خلية/بئر. وبعد معالجتها بتركيزات مختلفة من Lac-Phe تحت ظروف HG/PA لمدة 24 h، أُضيف 10 μL من كاشف الطقم إلى 100 μL من وسط الزرع في كل بئر، ثم حُضنت الخلايا عند 37°C لمدة 4 h. وقيس الامتصاص عند 450 nm باستخدام قارئ ميكروبليت متعدد الأنماط للحصول على قيمة الكثافة الضوئية (OD).
الرسو الجزيئي
تم تنزيل البنى البلورية لـ Lac-Phe و AMPKα1 من PubChem26. وقد أُجريت عملية الإرساء الجزيئي باستخدام CB-DOCK227.
التحليل الإحصائي
أجرى باحثون لم تكن لديهم معرفة بتوزيع المجموعات جميع قياسات تخطيط صدى القلب، والصبغ النسيجي، والتقديرات الكمية للصور. نُفذت جميع تحليلات البيانات باستخدام Prism وSPSS 20.0. كُررت كل تجربة ثلاث مرات على الأقل، وعُرضت البيانات في شكل المتوسط ± الانحراف المعياري. تم تقييم تجانس التباين باستخدام اختبار Levene. كما تم التأكد من التوزيع الطبيعي من خلال الفحص الرسومي للبواقي. أجريت المقارنات بين المجموعات المتعددة باستخدام تحليل التباين أحادي الاتجاه (one-way ANOVA)، يليه اختبار Tukey للمقارنات البعدية لإجراء مقارنات زوجية. وبالنسبة لبيانات اختبار تحمل الجلوكوز الفموي (OGTT)، استُخدم تحليل التباين ثنائي الاتجاه للقياسات المتكررة (two-way repeated-measures ANOVA)، مع اعتبار المجموعة كعامل بين المبحوثين والوقت كعامل داخل المبحوثين، يليه اختبار Bonferroni للمقارنات البعدية. اعتُبرت القيمة P < 0.05 ذات دلالة إحصائية.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
يعمل Lac-Phe على تحسين الوظيفة القلبية في الفئران المصابة باعتلال عضلة القلب السكري
لقد استحثثنا اعتلال عضلة القلب التوسعي (DCM) في فئران من سلالة C57BL/6J باستخدام نظام غذائي عالي الدهون (HFD) مقترناً بحقن الستريبتوزوتوسين (STZ) (الشكل 1أ) وتم توزيع فئران DCM التي تم إنشاؤها بنجاح عشوائياً على مجموعة غير معالجة (مجموعة DCM) ومجموعة معالجة بـ Lac-Phe، مع استخدام فئران C57BL/6J كضابط سلبي. ووفقاً للدراسة التي أجراها Li وآخرون.21
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
نقدم في هذه الدراسة أدلة تدعم التأثير العلاجي لـ Lac-Phe على اعتلال عضلة القلب التوسعي (DCM). حيث أدى Lac-Phe إلى تحسين إعادة تشكيل القلب والخلل الوظيفي القلبي في حالات DCM، مع تقليل إنتاج الكوليسترول في الخلايا العضلية القلبية وتحسين اختلال استقلاب الدهون. ومن الناحية الميكانيكية، زاد Lac-Phe من فسفرة AMPKα1. وبالتبعية، ارتبطت زيادة فسفرة AMPKα1 بزيادة فسفرة وتثبيط هدفه المصب HMGCR، مما أدى إلى خفض تخليق الكوليسترول وتحسين اختلال استقلاب الدهون في الخلايا العضلية القلبية في نهاية المطاف. وباختصار، تثبت هذه الدراسة أن La...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
تضارب المصالح:
ليس لدى المؤلفين ما يفصحون عنه.
شكر وتقدير
نود أن نعرب عن خالص امتناننا للباحثين والموظفين في الكلية السريرية بمستشفى برج الطبل في نانجينغ والمستشفى التابع لكلية الطب بجامعة نانجينغ على دعمهم التقني. تم تمويل هذا البحث من خلال منح مقدمة من المؤسسة الوطنية للعلوم الطبيعية في الصين (منح رقم 81870291 و 82300384)، ومؤسسة الصين لعلوم ما بعد الدكتوراه (منحة رقم 2023M731625)، ومؤسسة العلوم الطبيعية في مقاطعة جيانغسو (منحة رقم BK20220175). كما نقدر الموارد ودعم التعاون الذي قدمه معهد التخليق المتقدم في جامعة نانجينغ للتكنولوجيا.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| AMPK-IN-3 (مثبط p-AMPK) | MedChemExpress (MCE) | HY-132921 | يُستخدم عند 10 μM خلال تجارب تثبيط AMPK لتثبيط تأشير AMPK في الخلايا المعالجة بـ Lac-Phe. |
| طقم مقايسة الكوليسترول وإستر الكوليستيريل باستخدام Amplex Red | Beyotime | S0211S | تُستخدم لتحديد مستويات الكوليسترول الكلي في عينات المصل وعينات خلايا H9c2. |
| مضاد AMPKα1 | تكنولوجيا إشارات الخلايا | 2532; RRID: AB_330331 | الأجسام المضادة الأولية المستخدمة في تحليل لطخة ويسترن لبروتين AMPKα1. |
| مضاد GAPDH | تكنولوجيا إشارات الخلايا | 5174; RRID: AB_10622025 | الأجسام المضادة الأولية المستخدمة في تحليل لطخة ويسترن لبروتين GAPDH. |
| مضاد HMGCR | Abcam | ab174830; RRID: AB_2749818 | الأجسام المضادة الأولية المستخدمة في تحليل لطخة وسترن لـ HMGCR. |
| مضاد p-AMPKα1 (Thr172) | تكنولوجيا إشارات الخلية | 2535؛ RRID: AB_331250 | الأجسام المضادة الأولية المستخدمة في تحليل لطخة ويسترن لبروتين AMPK المفسفرα1. |
| مضاد p-HMGCR (Ser872) | Abcam | ab124350 | الأجسام المضادة الأولية المستخدمة في تحليل لطخة ويسترن لبروتين HMGCR المفسفر. |
| جسم مضاد لـ IgG الأرنب، مرتبط ببيروكسيداز الفجل (HRP) | تكنولوجيا إشارات الخلايا | 7074؛ RRID: AB_2099233 | يُستخدم بتخفيف 1:5,000 للكشف عن طريق لطخة ويسترن. |
| مضاد-βتوبولين- | تكنولوجيا إشارات الخلايا | 2128; RRID: AB_823664 | الأجسام المضادة الأولية المستخدمة في تحليل لطخة وسترن لـ βتوبولين- |
| أتورفاستاتين | MedChemExpress (MCE) | HY-17379 | تُستخدم هذه المادة بمفردها أو بالاشتراك مع Lac-Phe لتقييم التأثيرات على تراكم الدهون، ومستويات الكوليسترول الكلية، وفسفرة HMGCR في خلايا H9c2 المعالجة بـ HG/PA. |
| ألبومين المصل البقري | Sigma-Aldrich | A7906 | يُستخدم بتركيز 5% لمنع الارتباط غير النوعي أثناء تحليل لطخة ويسترن (western blot). |
| كاشف/طقم مقايسة برادفورد | Thermo Fisher Scientific | 23200 | تُستخدم لتحديد تركيز البروتين قبل تحليل لطخة ويسترن. |
| فئران من سلالة C57BL/6J (ذكور، بعمر 5 أسابيع) | مركز أبحاث الحيوانات النموذجية بجامعة نانجينغ | غير متاح | تُستخدم لإنشاء نموذج الفأر المصاب باعتلال عضلة القلب السكري المستحث بواسطة النظام الغذائي عالي الدهون وستريبتوزوتوسين (HFD/STZ). |
| طقم عد الخلايا-8 (CCK-8) | شيربايو (Sharebio) | SB-CCK8S | تُستخدم لقياس حيوية خلايا H9c2 بعد المعالجة. |
| محلول سترات منظم | جُهز داخلياً | لا ينطبق | يُحضّر عند درجة حموضة (pH) تبلغ 4.5، ويُستخدم لإذابة STZ وكعنصر تحكم ناقل مطابق. |
| النظام الغذائي الضابط (10% دهون، 20% بروتين، 70% كربوهيدرات) | Research Diets, Inc. | D12450J | تُستخدم كنظام غذائي للفئران في المجموعة الضابطة. |
| د-(+)-جلوكوز | Sigma-Aldrich | نظرًا لعدم توفر نص مصدر للترجمة، يرجى تزويدي بالمحتوى العلمي أو التعليمي المطلوب ترجمته من اللغة الإنجليزية إلى اللغة العربية، وسأقوم بتنفيذه وفقًا للمعايير المهنية والأكاديمية المحددة. | تُستخدم لمعالجة خلايا HG/PA ولإجراء اختبار تحمل الجلوكوز الفموي. |
| ثنائي ميثيل سلفوكسيد (DMSO) | Sigma-Aldrich | D2650 | يُستخدم كمذيب لـ AMPK-IN-3 وكعنصر تحكم ناقل مقابل. |
| دالبكو’وسط إيغل المعدل’وسط نمو | Gibco, Thermo Fisher Scientific | 11965092 | يُستخدم كوسط زرع أساسي لخلايا H9c2. |
| جهاز تخطيط صدى القلب بمحول طاقة بتردد 40 ميجاهرتز | FUJIFILM VisualSonics | Vevo 3100 LT؛ محول طاقة بتردد 40 ميجاهرتز | تُستخدم لقياس أبعاد البطين الأيسر وسرعة تدفق الدم عبر الصمام المترالي، ولاستخراج الكسر القذفي للبطين الأيسر (LVEF) والتقصير الجزئي (FS). |
| مثبت المجهر الإلكتروني | ServiceBio | G1102 | تُستخدم لتثبيت أنسجة قلب الفأر الطازجة من أجل المجهر الإلكتروني النافذ. |
| إيثانول | Sigma-Aldrich | E7023 | تُستخدم بتركيزات تزداد تدريجياً لعملية نزع الماء أثناء تحضير عينات المجهر الإلكتروني النافذ. |
| مصل جنين البقر | Gibco, Thermo Fisher Scientific | 10099141 | يُستخدم بتركيز 10% كمكمل لوسط زراعة خلايا H9c2. |
| خط خلايا H9c2 | صن سيل | RRID: CVCL_0286 | تُستخدم كنموذج لخلايا القلب في المختبر لتجارب العلاج بـ HG/PA و Lac-Phe. |
| صبغة الهيماتوكسيلين والإيوسين | ServiceBio | G1005-1/2 | تُستخدم للتقييم النسيجي لأنسجة القلب. |
| نظام غذائي عالي الدهون (60% سعرة حرارية من الدهون) | Research Diets, Inc. | D12492 | يُستخدم مع جرعة منخفضة من الـ STZ لإنشاء نموذج فأر مصاب باعتلال عضلة القلب السكري. |
| مجهر المجال المضيء عالي الدقة | Leica | DM2500 | تُستخدم للتصوير الكامل للشرائح لنسيج قلبي مصبوغ بقوة تكبير 20× التكبير. |
| ImageJ | المعاهد الوطنية للصحة | نظرًا لعدم توفر نص مصدر للترجمة، يرجى تزويدي بالمحتوى العلمي الذي ترغب في ترجمته إلى اللغة العربية، وسأقوم بتنفيذه وفقًا للمعايير المهنية والأكاديمية المحددة. | تُستخدم للتقدير الكمي الكثافتي لنتائج تحليل لطخة ويسترن. |
| أيزوفلوران | Sigma-Aldrich | 792632 | تُستخدم للتخدير أثناء تصوير صدى القلب للفئران. |
| كحول الإيزوبروبيل | Sigma-Aldrich | I9516 | تُستخدم بتركيز 60% أثناء صبغ المقاطع القلبية المجمدة بصبغة Oil Red O. |
| صبغة الدهون LD540 | Beyotime | C2050S-1 | يُستخدم في 10 μM لصبغ الدهون داخل الخلوية. |
| ماسون’صبغة ترايكروم لـ s | ServiceBio | G1006 | تُستخدم للتلوين النسيجي لأنسجة القلب. |
| إن-لاكتويل-فينيل ألانين (Lac-Phe) | MedChemExpress (MCE) | HY-146098 | أُعطِيَ للفئران المصابة باعتلال عضلة القلب التوسعي (DCM)، واستُخدِم لعلاج خلايا H9c2 المعرضة للجلوكوز المرتفع/حمض البالميتيك (HG/PA). |
| المحلول العامل لصبغة Oil Red O | ServiceBio | G1015-100ML | تُستخدم لصبغ الدهون في مقاطع أنسجة القلب المجمدة. |
| طقم Omni-ECL للتألق الكيميائي الضوئي عالي الكفاءة | EpiZyme | SQ203L | تُستخدم للتصوير الكيميائي المضيء لحزم البروتين بعد عملية لطخة ويسترن. |
| حمض البالميتيك | Sigma-Aldrich | P0500 | يُستخدم بتركيز 0.25 ملي مولار مع الجلوكوز العالي لإنشاء نموذج خلايا H9c2 المعالجة بـ HG/PA. |
| بارافورمالدهيد | Sigma-Aldrich | P6148 | يُحضّر كمحلول بتركيز 4% ويُستخدم لتثبيت أنسجة وخلايا القلب قبل الصبغ النسيجي أو صبغ الدهون. |
| بنسلين-ستربتومايسين | Gibco, Thermo Fisher Scientific | 15140122 | يُستخدم بتركيز 1% في وسط زراعة خلايا H9c2. |
| محلول ملحي منظم بالفوسفات (PBS) | Gibco, Thermo Fisher Scientific | 10010023 | يُستخدم للغسل أثناء إجراءات التلوين وكحامل مناظر في تجارب معالجة الخلايا. |
| منشور | برمجيات GraphPad | الإصدار 8.0 | تُستخدم للتحليل الإحصائي للبيانات التجريبية. |
| غشاء نقل PVDF، 0.45 μm | Thermo Fisher Scientific | 88518 | تُستخدم للنقل الكهربائي للبروتينات أثناء تحليل لطخة ويسترن. |
| طقم RNeasy Mini Kit | QIAGEN | 74104 | تُستخدم لعزل/تنقية الحمض النووي الريبي (RNA) الكلي من أنسجة القلب للفئران. |
| محلول كلوريد الصوديوم، 0.9% (المحلول الملحى الطبيعي) | Sigma-Aldrich | S8776 | تُستخدم لإذابة Lac-Phe وكمادة حاملة للمجموعة الضابطة وفئران DCM. |
| SPSS | IBM | الإصدار 20.0 | يُستخدم للتحليل الإحصائي للبيانات التجريبية. |
| ستريبتوزوتوسين (STZ) | Sigma-Aldrich | S0130 | تُعطى بالتزامن مع التغذية بنظام غذائي عالي الدهون (HFD) لإنشاء نموذج فأر مصاب باعتلال عضلة القلب السكري. |
| محلول TBS Tween-20 المنظم (20×) | Thermo Fisher Scientific | 28360 | تُستخدم لغسل الأغشية بعد التحضين بالأجسام المضادة الأولية والثانوية أثناء تحليل لطخة ويسترن. |
| مركب Tissue-Tek O.C.T. | Sakura Finetek | 4583 | تُستخدم لتضمين أنسجة القلب قبل تحضير المقاطع المجمدة لصبغة Oil Red O. |
| المجهر الإلكتروني النافذ | HITACHI | HT7800 | تُستخدم لفحص التغيرات في البنية الدقيقة لأنسجة قلب الفأر. |
| كاشف TRIzol | Invitrogen | 15596026 | تُستخدم لعزل الحمض النووي الريبوزي (RNA) الكلي من أنسجة القلب للفئران. |
| طقم تحضير مكتبة تسلسل الحمض النووي الريبي VAHTS Universal V10 RNA-seq | Vazyme | NR616-01 | تُستخدم لتحضير مكتبات تسلسل الحمض النووي الريبوزي (RNA-seq) للتحليل الترانسكريبتومي. |
| ليكتين جنين القمح (WGA) | ServiceBio | W7024 | تُستخدم للتقييم النسيجي لأنسجة القلب. |
المراجع
- Pan KL, Hsu YC, Chang ST, Chung CM, Lin CL. The role of cardiac fibrosis in diabetic cardiomyopathy: from pathophysiology to clinical diagnostic tools. Int J Mol Sci. 2023;24(10):8604.
- Saeedi P, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Zou R, et al. PGAM5-mediated PHB2 dephosphorylation contributes to diabetic cardiomyopathy by disrupting mitochondrial quality surveillance. Research. 2022;2022:0001.
- Jia G, DeMarco VG, Sowers JR. Insulin resistance and hyperinsulinaemia in diabetic cardiomyopathy. Nat Rev Endocrinol. 2016;12(3):144–53.
- Low Wang CC, Hess CN, Hiatt WR, Goldfine AB. Clinical update: cardiovascular disease in diabetes mellitus: atherosclerotic cardiovascular disease and heart failure in type 2 diabetes mellitus—mechanisms, management, and clinical considerations. Circulation. 2016;133(24):2459–502.
- Liu P, Zhang Z, Chen H, Chen Q. Pyroptosis: mechanisms and links with diabetic cardiomyopathy. Ageing Res Rev. 2024;94:102182.
- Park JJ. Epidemiology, pathophysiology, diagnosis and treatment of heart failure in diabetes. Diabetes Metab J. 2021;45(2):146–57.
- Gilca GE, et al. Diabetic cardiomyopathy: current approach and potential diagnostic and therapeutic targets. J Diabetes Res. 2017;2017:1310265.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. Int J Mol Sci. 2022;23(7):3587.
- Han X, et al. Cardiomyocyte OTUD1 drives diabetic cardiomyopathy via directly deubiquitinating AMPKα2 and inducing mitochondrial dysfunction. Nat Commun. 2025;16(1):666.
- Jia G, Hill MA, Sowers JR. Diabetic cardiomyopathy: an update of mechanisms contributing to this clinical entity. Circ Res. 2018;122(4):624–38.
- Yao Y, Yang B, Shi J. TiO(x)(OH)(4-2x) nanosheets with catalytic antioxidative activity alleviate oxidative injury in diabetic cardiomyopathy. J Am Chem Soc. 2025;147(4):3885–95.
- Seferovic PM, et al. Diabetic myocardial disorder: a clinical consensus statement of the Heart Failure Association of the ESC and the ESC Working Group on Myocardial & Pericardial Diseases. Eur J Heart Fail. 2024;26(9):1893–903.
- Wang H, et al. Inhibition of fatty acid uptake by TGR5 prevents diabetic cardiomyopathy. Nat Metab. 2024;6(6):1161–77.
- Zhao Y, et al. Ferroptosis: roles and molecular mechanisms in diabetic cardiomyopathy. Front Endocrinol. 2023;14:1140644.
- Nakamura M. Lipotoxicity as a therapeutic target in obesity and diabetic cardiomyopathy. J Pharm Pharm Sci. 2024;27:12568.
- Nakamura M, et al. Glycogen synthase kinase-3α promotes fatty acid uptake and lipotoxic cardiomyopathy. Cell Metab. 2019;29(5):1119–34.e12.
- Ritchie RH, Abel ED. Basic mechanisms of diabetic heart disease. Circ Res. 2020;126(11):1501–25.
- Thakur M, Tupe RS. Lipoxin and glycation in SREBP signaling: insight into diabetic cardiomyopathy and associated lipotoxicity. Prostaglandins Other Lipid Mediat. 2023;164:106698.
- Dhar A, et al. A comprehensive review of the novel therapeutic targets for the treatment of diabetic cardiomyopathy. Ther Adv Cardiovasc Dis. 2023;17:17539447231210170.
- Li VL, et al. An exercise-inducible metabolite that suppresses feeding and obesity. Nature. 2022;606(7915):785–90.
- Xiao S, et al. Lac-Phe mediates the effects of metformin on food intake and body weight. Nat Metab. 2024;6(4):659–69.
- Ying W, et al. N-lactoyl-phenylalanine modulates lipid metabolism in microglia/macrophage via the AMPK-PGC1α-PPARγ pathway to promote recovery in mice with spinal cord injury. J Neuroinflammation. 2025;22(1):167.
- Sha L, et al. N-Lac-Phe ameliorates myocardial cell death by improving mitochondrial dysfunction, ultimately improving TAC-induced heart failure. Cardiovasc Drugs Ther. 2026;40:1391–401.
- Ke J, Pan J, Lin H, Gu J. Diabetic cardiomyopathy: a brief summary on lipid toxicity. ESC Heart Fail. 2023;10(2):776–90.
- PubChem. PubChem. Available from: https://pubchem.ncbi.nlm.nih.gov/. Accessed August 15, 2026.
- Liu Y, Yang X, Gan J, et al. CB-Dock2: improved protein-ligand blind docking by integrating cavity detection, docking and homologous template fitting. Nucleic Acids Res. 2022;50(W1):W159–W164.
- GeneCards. GeneCards: the Human Gene Database. Version 6.1, June 17, 2026.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47(W1):W357–W364.
- Jo Y, DeBose-Boyd RA. Post-translational regulation of HMG CoA reductase. Cold Spring Harb Perspect Biol. 2022;14(12):a041253.
- Steinberg GR, Hardie DG. New insights into activation and function of the AMPK. Nat Rev Mol Cell Biol. 2023;24(4):255–72.
- Istvan ES, Deisenhofer J. Structural mechanism for statin inhibition of HMG-CoA reductase. Science. 2001;292(5519):1160–4.
- Beaudry D, et al. Statin therapy in cardiovascular diseases other than atherosclerosis. Curr Atheroscler Rep. 2007;9(1):25–32.
- Koch CG. Statin therapy. Curr Pharm Des. 2012;18(38):6284–90.
- Dewanjee S, et al. Autophagy in the diabetic heart: a potential pharmacotherapeutic target in diabetic cardiomyopathy. Ageing Res Rev. 2021;68:101338.
- Madonna R, et al. Empagliflozin inhibits excessive autophagy through the AMPK/GSK3β signalling pathway in diabetic cardiomyopathy. Cardiovasc Res. 2023;119(5):1175–89.
- Madhavi YV, et al. Targeting AMPK in diabetes and diabetic complications: energy homeostasis, autophagy and mitochondrial health. Curr Med Chem. 2019;26(27):5207–29.
- Fang C, et al. The AMPK pathway in fatty liver disease. Front Physiol. 2022;13:970292.
- Liu S, et al. AICAR-induced activation of AMPK inhibits TSH/SREBP-2/HMGCR pathway in liver. PLoS One. 2015;10(5):e0124951.
- Zhou H, et al. Empagliflozin rescues diabetic myocardial microvascular injury via AMPK-mediated inhibition of mitochondrial fission. Redox Biol. 2018;15:335–46.
- Lu QB, et al. METRNL ameliorates diabetic cardiomyopathy via inactivation of cGAS/STING signaling dependent on LKB1/AMPK/ULK1-mediated autophagy. J Adv Res. 2023;51:161–79.
- Wang D, et al. FGF1(ΔHBS) prevents diabetic cardiomyopathy by maintaining mitochondrial homeostasis and reducing oxidative stress via AMPK/Nur77 suppression. Signal Transduct Target Ther. 2021;6(1):133.
- He L. Metformin and systemic metabolism. Trends Pharmacol Sci. 2020;41(11):868–81.
- Yang F, et al. Metformin inhibits the NLRP3 inflammasome via AMPK/mTOR-dependent effects in diabetic cardiomyopathy. Int J Biol Sci. 2019;15(5):1010–9.
- Regitz-Zagrosek V, Gebhard C. Gender medicine: effects of sex and gender on cardiovascular disease manifestation and outcomes. Nat Rev Cardiol. 2023;20(4):236–47.
- Evrony GD, Hinch AG, Luo C. Applications of single-cell DNA sequencing. Annu Rev Genomics Hum Genet. 2021;22:171–97.
- Verboom K, et al. Smarter single cell total RNA sequencing. Nucleic Acids Res. 2019;47(16):e93.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
إعادة الطباعة والأذونات
استكشف المزيد من المقالات
تم نشر هذه المقالة
الفيديو قريباً