يصف هذا البروتوكول طرقاً لتقييم آثار مادة paeoniflorin على الخلل الوظيفي المستحث بواسطة البروتين الدهني منخفض الكثافة المؤكسد في الخلايا البلعمية RAW264.7، وذلك من خلال تقييم استقلاب الدهون، والاستجابات الالتهابية، والإجهاد التأكسدي، والموت الخلوي المبرمج، ومسارات التأشير المرتبطة بـ AMP-activated protein kinase لدعم الدراسات الميكانيكية للخلل الوظيفي في الخلايا البلعمية.
مقالة بحثية
يخفف البايونيفلورين من الخلل الوظيفي الناجم عن البروتين الدهني منخفض الكثافة المؤكسد في خلايا RAW264.7 بمشاركة بروتين كيناز المنشط بـ AMP
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
تصف هذه الدراسة بروتوكولاً يدمج بين علم الصيدلة الشبكي والتجارب المختبرية لتقييم التأثيرات الوقائية لـ Huangqin Tang (HQT) وأحد مكوناته النشطة بيولوجياً، وهو paeoniflorin (PF)، ضد خلل وظائف الخلايا البلعمية الناجم عن البروتين الدهني منخفض الكثافة المؤكسد (ox-LDL)، وللتحقيق في إشارات البروتين كيناز المنشط بـ AMP (AMPK). حدد علم الصيدلة الشبكي أهداف ومسارات HQT المرتبطة بتصلب الشرايين (AS). استُخدم نموذج خلايا RAW264.7 البلعمية المحفزة بـ ox-LDL لتقييم تراكم الدهون، وتدفق الكوليسترول، ومستويات أدينوسين ثلاثي الفوسفات (ATP)، والاستجابات الالتهابية، ووظيفة الميتوكوندريا، والإجهاد التأكسدي، والموت الخلوي المبرمج، وعلامات النمط الظاهري للخلايا البلعمية. تمت مقارنة HQT و PF بتركيزات غير سامة للخلايا. تم تقييم مشاركة AMPK باستخدام مقايسة الإزاحة الحرارية الخلوية (CETSA)، والتثبيط الدوائي، وتثبيط الجينات بواسطة الحمض النووي الريبي المتداخل الصغير (siRNA). تم فحص ناقل كاسيت ربط ATP A1 (ABCA1)، ومستقبل X الكبدي ألفا (LXRα)، والبروتينات المرتبطة بالعامل النووي كابا B (NF-κB)، والبروتينات المرتبطة بالموت الخلوي المبرمج عن طريق لطخة ويسترن. حدد علم الصيدلة الشبكي 12 هدفاً متداخلًا، بما في ذلك TNF و PPARG و NOS3، والتي كانت غنية في المسارات المتعلقة باستقلاب الدهون، والالتهاب، وتصلب الشرايين (AS)، وإشارات AMPK. أدى كل من PF و HQT إلى زيادة فسفرة AMPK، وتقليل تراكم الدهون وإفراز السيتوكينات الالتهابية الناجم عن ox-LDL، وتحسين تدفق الكوليسترول. استعاد PF مستويات ATP وجهد غشاء الميتوكوندريا، وقلل من إنتاج أنواع الأكسجين التفاعلية والموت الخلوي المبرمج، وزاد من تعبير ABCA1. أظهرت مقايسة CETSA تعزيز الاستقرار الحراري لـ AMPK بعد العلاج بـ PF. أدى التثبيط الدوائي أو تثبيط AMPK بواسطة siRNA إلى إضعاف التغيرات المرتبطة بـ PF في تعبير ABCA1، وتدفق الكوليسترول، وتراكم الدهون، وتنشيط LXRα، وتثبيط NF-κB. قلل PF من الخلايا البلعمية CD86⁺ وزاد من الخلايا البلعمية CD206⁺، بينما أدى إسكات AMPK إلى عكس هذه التغيرات جزئياً. أنتج تثبيط NF-κB تأثيرات مماثلة على توازن الكوليسترول وعلامات النمط الظاهري للخلايا البلعمية. يتيح هذا البروتوكول تقييم التأثيرات التي يتوسطها PF و HQT على خلل وظائف الخلايا البلعمية الناجم عن ox-LDL وإشارات AMPK المرتبطة بها. في ظل الظروف المختبرة، حمى PF خلايا RAW264.7 من خلل استقلاب الدهون، والالتهاب، والإجهاد التأكسدي، وخلل وظائف الميتوكوندريا، والموت الخلوي المبرمج الناجم عن ox-LDL، وأنتج PF و HQT تغيرات متشابهة في الاتجاه في النقاط النهائية المرتبطة بالخلايا البلعمية.
المقدمة
تعد أمراض القلب والأوعية الدموية سبباً رئيساً للمراضة والوفيات في جميع أنحاء العالم، ويمثل تصلب الشرايين (AS) أساساً مرضياً رئيسياً للعديد من اضطرابات القلب والأوعية الدموية1,2,3,4. يتميز تصلب الشرايين بتراكم الدهون5، والالتهاب المزمن6، والتكون التدريجي للويحات داخل جدار الشرايين7. ويتضمن بدء تطوره وتفاقمه خللاً في وظيفة البطانة الغشائية، والإجهاد التأكسدي، واختلال استقلاب الدهون، وتنشيطاً مناعياً مستمراً. حيث يعمل البروتين الدهني منخفض الكثافة المؤكسد (ox-LDL) على تعزيز تنشيط البطانة الغشائية والتعبير عن جزيئات الالتصاق والكيموكينات، مثل البروتين الجاذب للخلايا الوحيدة-1 (MCP-1)، مما يسهل تجنيد الخلايا الوحيدة في الغلالة الباطنة للشريان8. وبعد تمايزها إلى خلايا بلعمية، تقوم هذه الخلايا بامتصاص ox-LDL عبر مستقبلات الكنس وتتحول تدريجياً إلى خلايا رغوية محملة بالدهون9. وتصاحب هذه العملية زيادة في إنتاج أنواع الأكسجين التفاعلية (ROS) والسيتوكينات المحفزة للالتهاب10، مما يؤدي إلى تفاقم التهاب الأوعية الدموية والإصابة التأكسدية. ومن بين هذه الوسائط الالتهابية، يساهم عامل نخر الورم ألفا (TNF-α) في تكوين الخلايا الرغوية وإشارات الالتهاب11، وذلك جزئياً من خلال تنشيط مسار العامل النووي كابا B (NF-κB). وفي ظروف الراحة، يتم الاحتفاظ بـ NF-κB في السيتوبلازم من خلال تفاعله مع مثبط NF-κB ألفا (IκB-α)12. وعند التحفيز، يتم تنشيط كيناز IκB (IKK)، مما يؤدي إلى تحلل IκB-α ومن ثم انتقال NF-κB إلى النواة13، حيث يحفز نسخ الجينات الالتهابية، بما في ذلك TNF-α، وإنترلوكين-1 بيتا (IL-1β)، وإنترلوكين-6 (IL-6)14. وعلى الرغم من التقدم في العلاجات الخافضة للدهون والمضادة للالتهابات، لا تزال هناك مخاطر متبقية كبيرة على القلب والأوعية الدموية، مما يسلط الضوء على الحاجة إلى تطوير استراتيجيات علاجية إضافية تستهدف في آن واحد عمليات مرضية متعددة متورطة في تصلب الشرايين.
تحتوي تركيبات الطب الصيني التقليدي (TCM) على العديد من المكونات النشطة بيولوجياً والتي قد تمارس تأثيرات علاجية من خلال التفاعلات مع أهداف جزيئية ومسارات تأشير متنوعة15,16. وقد يوفر نمط العمل هذا، متعدد المكونات والأهداف، مزايا محتملة في إدارة الأمراض المعقدة مثل تصلب الشرايين (AS). وتعد تركيبة هوانغ تشين تانغ (HQT) تركيبة كلاسيكية من الطب الصيني التقليدي تتكون من أربع أعشاب طبية هي: Scutellaria baicalensis (Huangqin)، وPaeonia lactiflora (Baishao)، وGlycyrrhiza uralensis (Gancao)، وZiziphus jujuba (Dazao)17,18. وقد أُفيد بأن المكونات النشطة بيولوجياً المستخلصة من هذه الأعشاب تعمل على تنظيم استقلاب الدهون، وتخفيف الاستجابات الالتهابية، وتقليل الإجهاد التأكسدي19. ومع ذلك، لا تزال الأهداف الجزيئية ومسارات التأشير الكامنة وراء التأثيرات المحتملة لتركيبة HQT المضادة لتصلب الشرايين غير مفهومة بشكل كامل.
في الدراسة الحالية، تم دمج علم الصيدلة الشبكي مع تجارب مخبرية (in vitro) لإنشاء طريقة لاستقصاء الآليات المحتملة الكامنة وراء التأثيرات الوقائية لـ HQT وأحد مكوناته النشطة بيولوجياً، وهو paeoniflorin (PF)، ضد خلل وظائف الخلايا البلعمية الناجم عن ox-LDL. أولاً، تم إجراء تحليل علم الصيدلة الشبكي لتحديد المركبات المرشحة، والأهداف العلاجية، ومسارات الإشارة المرتبطة بـ HQT وAS. وبناءً على التوقع بمشاركة إشارات AMP-activated protein kinase (AMPK) والأدلة المنشورة سابقاً، تم اختيار PF للتحقق التجريبي. وقد تم تقييم تأثيراته على تراكم الدهون، وتدفق الكوليسترول، والاستجابات الالتهابية، وأيض الطاقة، ووظيفة الميتوكوندريا، والإجهاد التأكسدي، والموت الخلوي المبرمج (apoptosis)، وعلامات النمط الظاهري للخلايا البلعمية في خلايا RAW264.7. كما تمت مقارنة HQT وPF في ظل ظروف غير سامة للخلايا. علاوة على ذلك، تم استخدام التثبيط الدوائي وإسكات الجينات بواسطة RNA المتداخل الصغير (siRNA) لـ AMPK لفحص ما إذا كان التنظيم المعتمد على AMPK لـ ATP-binding cassette transporter A1 (ABCA1) وإشارات liver X receptor alpha (LXRα)/NF-κB قد ساهمت في التأثيرات الوقائية لـ PF. يوفر هذا النهج المتكامل إطاراً لتقييم التأثيرات التي يتوسطها HQT وPF على خلل وظائف الخلايا البلعمية الناجم عن ox-LDL، وتحديد ما إذا كانت هذه الطريقة مناسبة لاستقصاء الآليات المرتبطة بـ AMPK في نماذج مخبرية مماثلة.
البروتوكول
تم تحليل GSE100927 ك مجموعة بيانات ثانوية متاحة للعموم وغير محددة للهوية. لم يتم تجنيد أي مشاركين، ولم يتم جمع عينات بشرية جديدة، ولم يتم الوصول إلى أي معرفات شخصية مباشرة؛ وبناءً على ذلك، لم تكن هناك حاجة لموافقة إضافية من مجلس المراجعة المؤسسية أو موافقة مستنيرة. استخدمت التجارب الخلوية فقط خط خلايا بلعمية فئرانية معتمد ولم تتضمن حيوانات حية، أو أنسجة حيوانية أولية، أو مشاركين بشر، أو مواد بشرية أولية؛ وبالتالي، لم تكن الموافقة المؤسسية لأخلاقيات البحث البشري أو الحيواني قابلة للتطبيق.
تحديد المركبات النشطة بيولوجياً وأهدافها في HQT
تم الدخول إلى قاعدة بيانات ومنصة تحليل علم الصيدلة النظمي للطب الصيني التقليدي (TCMSP)، وPubMed، والبنية التحتية الوطنية للمعرفة في الصين (CNKI)، وقواعد بيانات UniProt باستخدام الإصدارات المتاحة في 16 يوليو 2026. تم البحث عن كل من Scutellaria baicalensis Georgi، وPaeonia lactiflora Pall.، وGlycyrrhiza uralensis Fisch.، وZiziphus jujuba Mill. بشكل منفصل في قاعدة بيانات TCMSP باستخدام أسمائها الطبية باللغات اللاتينية والإنجليزية والصينية. تم الاحتفاظ بالمركبات التي بلغت توافرها الحيوي الفموي (OB) نسبة ≥30% وقيمة تشابه دوائي (DL) تبلغ ≥0.18. كما تم دمج المركبات المتكررة التي تم تحديدها في أكثر من مادة نباتية واحدة باستخدام اسم المركب والمعرف المقابل له في TCMSP.
تم البحث في PubMed باستخدام المصطلحات (“Huangqin Tang” OR “Huang-Qin-Tang” OR “Huang Qin Tang”) AND (constituent OR compound OR ingredient OR phytochemical OR target)، كما تم البحث في CNKI باستخدام “Huangqin Tang” AND (“chemical constituents” OR “active ingredients” OR “pharmacological targets”). وتمت مراجعة المقالات المنشورة حتى 16 ديسمبر 2025. وقد أُدرجت المركبات أو الأهداف فقط عندما يكون ارتباطها بـ HQT أو بأحد مكوناته النباتية الأربعة قد تم الإبلاغ عنه صراحةً. كما استُبعدت المراجعات التي تفتقر إلى أدلة أولية يمكن تتبعها، والمركبات غير المسماة، والأهداف المتوقعة التي تفتقر إلى دعم تجريبي أو دعم من قواعد البيانات.
تم تعيين البروتينات المستهدفة باستخدام أداة تعيين المعرفات (identifier-mapping tool) في قاعدة بيانات UniProt، مع حصر الكائن الحي في Homo sapiens (معرف التصنيف 9606). تم الإبقاء على رموز الجينات البشرية المعتمدة، بينما حُذفت المدخلات غير المعينة والمكررة. ثم استُوردت قائمة الحواف (edge list) للمركب والهدف بعد إزالة التكرارات إلى برنامج تصور الشبكات Cytoscape (الإصدار 3.7.2)، حيث تم بناء شبكة المركب والهدف لـ HQT.
تحديد وتحليل المعلوماتية الحيوية للأهداف المرتبطة بـ AS
تم الوصول إلى قواعد بيانات GeneCards، وOnline Mendelian Inheritance in Man (OMIM)، وComparative Toxicogenomics Database (CTD)، وGene Expression Omnibus (GEO) باستخدام الإصدارات المتاحة في 16 يوليو 2026. استُخدم مصطلح "atherosclerosis" للبحث في GeneCards وOMIM وCTD. تم الاحتفاظ بالجينات المسترجعة من GeneCards التي سجلت درجة صلة (Relevance Score) تبلغ ≥1.163، وهو ما يتوافق مع متوسط الدرجات لجميع السجلات المسترجعة. كما تم تضمين الجينات المرتبطة بـ AS الموثقة مباشرة من OMIM وCTD فقط.
تم تنزيل مصفوفة السلسلة GSE100927، وملف تعليقات العينات، وملف تعليقات المنصة GPL17077 من قاعدة بيانات GEO. صُنفت جميع عينات الشرايين الطرفية البشرية البالغ عددها 104 عينات إلى AS أو مجموعة ضابطة (Control) وفقًا للبيانات الوصفية للنمط الظاهري في المستودع، ولم يتم استبعاد أي عينات بناءً على موقع الشريان.
أُجريت تحليلات المعلوماتية الحيوية باستخدام برنامج R الإحصائي (الإصدار 4.3.2) مع حزمة limma (الإصدار 3.58.1)، وحزمة ggplot2 (الإصدار 3.4.4)، وحزمة ComplexHeatmap (الإصدار 2.18.0)، وحزمة clusterProfiler (الإصدار 4.10.1)، وحزمة org.Hs.eg.db (الإصدار 3.18.0). تم تعيين مسميات المسابر باستخدام ملف تعليقات المنصة GPL17077، وتم استبعاد المسابر التي تفتقر إلى رموز جينية معتمدة. كما تم حساب متوسط المسابر المتعددة التي تشير إلى الجين نفسه باستخدام دالة avereps. طُبق تحويل log2(x + 1) فقط عندما تجاوز المئين 99 قيمة 100؛ وخلاف ذلك، تم الاحتفاظ بالقيم اللوغاريتمية المقدمة. كما تمت معايرة المصفوفات باستخدام طريقة quantile.
تم ترميز العينات باسم "Control" و "AS"، كما تم إنشاء مصفوفة تصميم خالية من التقاطع باستخدام model.matrix(~0 + group)تَمَّ تطبيق النماذج الخطية باستخدام الـ lmFit, إنشاء التباينات (makeContrasts), ملاءمة التباينات، و إيبايز (eBayes) الوظائف. وقد استُخلصت جميع الجينات باستخدام topTable(number = Inf, adjust.method = “BH”)عُرِّفت الجينات ذات التعبير التفاضلي بأنها تلك التي تمتلك قيمة مطلقة للوغاريتم2 تغير طي (fold change) أكبر من 1 وقيمة اسمية p القيمة <0.05، بينما تم التعديل وفقاً لطريقة بنجاميني-هوخبرج (Benjamini–Hochberg) p تم الاحتفاظ بالقيم في المخرجات الكاملة.
تَمَّ إنشاء مخططات البركان (Volcano plots) باستخدام اللوغاريتم2 قيم التغير الطي (fold-change) و -log₁₀ اسمي p القيم. تم إنشاء الخرائط الحرارية بعد إجراء عملية التقييس لكل صف. زتوحيد درجات (z-score) الجينات المختارة. وقد طُبقت إعدادات المعالجة المسبقة والتصور ذاتها على جميع العينات.
تم توحيد الجينات المستمدة من GeneCards وOMIM وCTD وGEO باستخدام قاعدة بيانات UniProt. وحُوّلت معرفات الجينات إلى رموز جينية معتمدة بأحرف كبيرة، كما حُذفت المدخلات الفارغة وغير المحددة والمكررة من كل مصدر بيانات. وعُرِّفت الأهداف المرتبطة بـ AS المتفق عليها بأنها الجينات التي تم تحديدها في مصدرين على الأقل من مصادر البيانات الأربعة. واستُخدمت دالة intersect() في لغة R لتحديد الجينات المشتركة مع مجموعة أهداف HQT الموحدة.
تم إرسال أهداف HQT-AS المتداخلة إلى قاعدة بيانات STRING (الإصدار 12.0)، والتي تم الوصول إليها في 16 ديسمبر 2025. وقد اقتصر التحليل على Homo sapiens، مع ضبط الحد الأدنى لدرجة التفاعل عند 0.700، والاحتفاظ بجميع قنوات الأدلة، دون إضافة أي متفاعلات من الدرجة الأولى أو الثانية. تم تصدير جدول التفاعلات واستيراده في برنامج Cytoscape كشبكة غير موجهة. كما تم حذف الحلقات الذاتية والحواف المكررة، وحساب قيم مركزية الدرجة، والمركزية البينية، ومركزية القرب باستخدام إضافة CentiScaPe (الإصدار 2.2). وعُرّفت الجينات المحورية بأنها تلك التي تتجاوز فيها جميع مقاييس المركزية الثلاثة المتوسطات المقابلة في الشبكة.
تم تحويل رموز الجينات المعتمدة إلى معرفات Entrez باستخدام دالة bitr. وتم استبعاد المعرفات غير المحددة والمكررة، واستُخدمت جميع الجينات التي تم تحديدها بنجاح في مجموعة البيانات المشروحة كخلفية. أُجري تحليل إثراء الوجود الجيني (Gene Ontology) لجميع الأنطولوجيات باستخدام enrichGO (ont = “ALL”)، كما أُجري تحليل إثراء مسارات موسوعة كيوتو للجينات والجينومات (Kyoto Encyclopedia of Genes and Genomes) باستخدام enrichKEGG (organism = “hsa”). طُبق تصحيح بنجاميني-هوكبرج (Benjamini–Hochberg)، وتم الاحتفاظ بالمصطلحات المثرى التي كانت قيمة p المعدلة لها <0.05.
تم توفير النصوص البرمجية الكاملة للمعالجة المسبقة، والتعبير التفاضلي، والتصور، والإثراء تحت مسمى TCMSP analysis.R و Transcriptome analysis.R. وبناءً على نتائج تحليل الشبكة والأدلة المنشورة، تم تحديد paeoniflorin (PF) و liquiritin و baicalin و wogonoside و glycyrrhizic acid ككونونات أساسية في HQT20. وقد اختير PF كمركب ممثل نظرًا لأدواره المسجلة في تنظيم استقلاب الدهون ومسار إشارات AMP-activated protein kinase.
تحضير مستخلص HQT
تم دمج نباتات S. baicalensis Georgi و P. lactiflora Pall. و G. uralensis Fisch. و Z. jujuba Mill. الموثقة بنسبة وزن جاف بلغت 3:2:2:3. أضيف الماء منزوع الأيونات بنسبة 1:10 (w/v)، وتم تسخين الخليط تحت الارتجاع لمدة 1 h. رُشح المستخلص وهو ساخن، ثم استُخلص الراسب مرة ثانية بالماء منزوع الأيونات بنسبة 1:8 (w/v) لمدة 1 h، وفقاً لما تم وصفه سابقاً19. جُمعت الرشاحات، ورُكزت تحت ضغط منخفض عند 60°C، وجُففت بالتفريغ حتى الوصول إلى وزن ثابت؛ حيث بلغت حصيلة الاستخلاص 36.34%. أذيب المستخلص المجفف في ماء معقم بتركيز 1 g/mL، ورُشح عبر غشاء بمسامية 0.22 µm، ثم قُسم إلى حصص صغيرة وخُزن عند −20°C حتى الاستخدام. عُبر عن التركيزات التجريبية بميكروغرام من المستخلص المجفف لكل مليلتر من الوسط الزراعي.
زراعة الخلايا، والترانسفكشن، والمعالجة
تم استنبات الخلايا البلعمية الفأرية من سلالة RAW264.7 في وسط Dulbecco's modified Eagle عالي الجلوكوز، مُدعم بـ 10% من مصل الجنين البقري، و100 U/mL من البنسلين، و100 µg/mL من الستربتومايسين، عند درجة حرارة 37°C في حاضنة رطبة تحتوي على 5% CO2. تم إجراء استنبات فرعي للخلايا عند وصولها إلى حالة تلاقي تبلغ 80% تقريبًا، واستُخدمت فقط الخلايا التي تتراوح ممراتها بين 5 و20 بعد الإذابة. تم التحقق من هوية الخط الخلوي بمقارنتها مع شهادة المستودع، كما تم مراقبة مورفولوجيا الخلايا، وقدرتها على الالتصاق، وخصائص نموها بشكل روتيني. استُخدمت فقط المزارع الخالية من الميكوبلازما. وتم التخلص من المزارع التي ظهر بها تلوث، أو نمو غير طبيعي، أو تفجُّؤ مفرط، أو حطام خلوي واسع، أو انفصال ملحوظ، أو توزيع غير متساوٍ للخلايا.
لإسكات AMPKα1، تم استزراع الخلايا بكثافة 2 × 10⁵ خلية لكل بئر في 2 mL من وسط الاستزراع في أطباق ذات 6 آبار، وأُجريت عملية التعداء (transfection) عندما وصلت نسبة الاندماج (confluence) إلى 50%–60%. تم تخفيف إجمالي 100 pmol من si-AMPKα1 أو siRNA غير مستهدف في 125 µL من وسط منخفض المصل، بينما خُفف 5 µL من كاشف التعداء القائم على الدهون بشكل منفصل في 125 µL من وسط منخفض المصل. وبعد التحضين لمدة 15 min في درجة حرارة الغرفة، جُمِع المحلولان وأُضيفا قطرة بقطرة إلى الخلايا للوصول إلى تركيز نهائي من siRNA يبلغ 50 nM. وكانت تسلسلات si-AMPKα1 كما يلي: التسلسل المعنى (sense)، 5′-CCCATCTTATAGTTCAACCAT-3′، والتسلسل المضاد للمعنى (antisense)، 5′-ATGGTTGAACTATAAGATGGG-3′. استُبدل وسط الاستزراع بعد 6 h، واستمر التحضين لمدة إجمالية بلغت 48 h قبل المعالجة بـ ox-LDL وPF. تم تأكيد تثبيط AMPKα1 عن طريق qRT-PCR واللطخة الغربية (western blotting)، وأُدرجت فقط التجارب التي أظهرت انخفاضاً معنوياً مقارنة بمجموعة siRNA الضابطة السالبة في التحليلات اللاحقة.
تم تحضير PF وdorsomorphin وBAY 11-7082 في ثنائي ميثيل سلفوكسيد (DMSO)، بينما تم تحضير HQT في ماء معقم. تم الحفاظ على التركيز النهائي لـ DMSO عند ≤0.1% في جميع مجموعات المعالجة، وأُضيف المذيب المقابل إلى مجموعات الضبط.
لإجراء فحص التركيز، عولجت الخلايا لمدة 24 h باستخدام PF بتركيزات 0 أو 1 أو 5 أو 10 أو 20 أو 40 µM، أو HQT بتركيزات 0 أو 12.5 أو 25 أو 50 أو 100 أو 200 µg/mL. بعد ذلك، تم تقييم حيوية الخلايا وفسفرة AMPK. وبناءً على هذه النتائج، تم اختيار 20 µM من PF و100 µg/mL من HQT لجميع التجارب اللاحقة.
لمقارنة PF وHQT، شملت مجموعات المعالجة مجموعة ضابطة، ومجموعة 50 µg/mL ox-LDL، ومجموعة ox-LDL مع 20 µM PF، ومجموعة ox-LDL مع 100 µg/mL HQT. تم تحضين جميع المجموعات لمدة 24 h. وللتثبيط الدوائي لـ AMPK، تمت معالجة مجموعة ox-LDL مع PF مسبقاً بـ 10 µM dorsomorphin لمدة 1 h قبل المعالجة المشتركة لمدة 24 h21,22.
للتثبيط الجيني لـ AMPK، تم ترانسفكشن الخلايا بـ si-NC أو si-AMPKα1 لمدة 48 h، ثم وُزعت على مجموعات: Control، و ox-LDL، و PF، ومجموعة si-AMPK مع PF. تلقت مجموعتا PF و si-AMPK مع PF تركيز 50 µg/mL من ox-LDL مع 20 µM من PF لمدة 24 h. بينما تلقت مجموعة ox-LDL مادة ox-LDL وحدها، في حين تلقت مجموعة Control المذيب المقابل.
لتقييم دور مسار إشارات NF-κB، تمت معالجة مجموعة علاجية إضافية مسبقاً بـ 10 µM من BAY 11-7082 لمدة 1 h قبل التعرض لـ 50 µg/mL من ox-LDL لمدة 24 h23,24,25. بعد ذلك، تم تحديد تعبير ABCA1، وتدفق الكوليسترول، وتراكم الدهون، ونسب البلاعم CD86⁺ وCD206⁺.
ما لم يُنص على خلاف ذلك، تم استزراع الخلايا قبل 12–16 h من المعالجة، واستُخدمت ثلاث آبار مكررة لكل مجموعة معالجة. وقد أُجري كل مقايسة باستخدام ثلاث تحضيرات خلوية مستزرعة بشكل مستقل في أيام مختلفة (n = 3)، باستثناء فحص حيوية الخلايا، الذي تألف من خمس تجارب مستقلة مع خمس آبار مكررة تقنيًا لكل تركيز. وتم حساب متوسط المكررات التقنية، والقياسات المزدوجة، والمجالات المجهرية المتعددة بشكل هرمي للحصول على قيمة واحدة لكل تجربة مستقلة.
تم استخدام المزارع التي كانت ملتصقة بشكل متجانس وبنسبة تلاقي بلغت 60%–80% تقريبًا، أو بنسبة تلاقي 50%–60% لتجارب عفن التحول (transfection)، فقط في عملية المعالجة. المواد والبرمجيات والمعدات الأساسية مدرجة في جدول المواد المرفق.
اختبار حيوية الخلايا وتفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي
تم استزراع خلايا RAW264.7 بكثافة 5 × 10³ خلية لكل بئر في أطباق ذات 96 بئراً، وتُركت لتلتصق طوال الليل. عولجت الخلايا لمدة 24 h بتركيزات PF وHQT الموضحة في القسم 4. تم تحديد حيوية الخلايا عن طريق استبدال وسط المزرعة بـ 100 µL من المحلول التشغيلي لمقايسة حيوية الخلايا، متبوعاً بالتحضين لمدة 2 h عند 37°C في الظلام. تم قياس الامتصاصية عند 450 nm.
تضمنت التجربة آباراً فارغة تحتوي على الكاشف فقط، وتم طرح قيم امتصاصها من جميع القياسات. وحُسب متوسط قيم الامتصاص لخمسة آبار مكررة تقنياً لكل تركيز. كما حُسبت حيوية الخلايا وفق المعادلة التالية: (امتصاص المجموعة المعالجة/امتصاص مجموعة الضبط) × 100، مع تعريف مجموعة الضبط غير المعالجة بنسبة 100%. أُجريت خمس تجارب مستقلة.
تم استخلاص الـ RNA الكلي باستخدام كاشف استخلاص RNA مكون من الفينول والجوانيدينيوم، واستُخدمت فقط العينات التي تتراوح قيم A260/A280 فيها بين 1.8 و2.0. تم إجراء النسخ العكسي لمقدار 1 µg من الـ RNA الكلي، واحتوى كل تفاعل qPCR بمقدار 20 µL على 10 µL من 2× SYBR Green master mix، و0.4 µL من كل من البادئات الأمامية والعكسية بتركيز 10 µM، و2 µL من الـ cDNA، و7.2 µL من الماء الخالي من النوكلياز.
أُجري تفاعل البوليميراز المتسلسل الكمي (Quantitative PCR) عند درجة حرارة 95°C لمدة 30 s، يليه 40 دورة تتكون من 95°C لمدة 10 s و60°C لمدة 30 s. بعد ذلك، أُجري تحليل منحنى الانصهار في نطاق حراري من 65°C إلى 95°C. وكانت تسلسلات البادئات كما يلي: بادئ Prkaa1 الأمامي، 5′-ACCAGAAGCGGTGCCGGAAAGCTGG-3′؛ وبادئ Prkaa1 العكسي، 5′-TGTAGTCGGTTTATGCAGCAACGAG-3′؛ وبادئ Gapdh الأمامي، 5′-CGACTTCAACAGCAACTCCCACTCTTCC-3′؛ وبادئ Gapdh العكسي، 5′-TGGGTGGTCCAGGGTTTCTTACTCCTT-3′.
تم تحليل كل عينة في ثلاث مكررات تقنية، مع إدراج ضوابط خالية من القالب. ولم تُقبل أزواج البادئات إلا عند ملاحظة ذروة انصهار واحدة وعدم اكتشاف أي تضخيم في الضوابط الخالية من القالب. وحُسب التعبير النسبي لجين Prkaa1 باستخدام طريقة 2−ΔΔCt مع استخدام Gapdh كجين مرجعي، كما تم توحيد التعبير في مجموعة si-NC ليكون 1.
قياس تراكم الدهون، ومستويات ATP، وتدفق الكوليسترول
لإجراء صبغ Oil Red O، تم استزراع خلايا RAW264.7 بكثافة 5 × 10⁴ خلية لكل بئر في 500 µL من وسط الاستزراع في أطباق ذات 24 بئراً. وبعد المعالجة، غُسلت الخلايا مرتين باستخدام 500 µL من المحلول الملحي المنظم بالفوسفات (PBS)، ثم ثُبّتت باستخدام 500 µL من الفورمالين المنظم المتعادل بتركيز 10% لمدة 20 min، وغُسلت مرتين بمحلول PBS، وشُطفت مرة واحدة باستخدام 500 µL من الإيزوبروبانول بتركيز 60%، ثم صُبغت باستخدام 500 µL من محلول عمل Oil Red O المُحضّر حديثاً لمدة 15 min في درجة حرارة الغرفة. غُسلت الخلايا المصبوغة بالماء المقطر حتى تصبح الخلفية صافية. تم الحصول على خمسة حقول مجهرية من كل بئر كما هو موضح في القسم 8، وحُسبت المنطقة الموجبة لصبغة Oil Red O بقسمة المنطقة الموجبة على المساحة الإجمالية للحقل × 100 باستخدام عتبة لونية ثابتة. قُبلت نتائج الصبغ فقط عندما أظهرت الخلايا الضابطة الحد الأدنى من الصبغ، وأظهرت الخلايا المعالجة بـ ox-LDL قطرات دهنية داخل خلوية منفصلة، وظلت الخلفية خارج الخلوية صافية. أما العينات التي أظهرت ترسبات منتشرة أو صبغاً غير متجانس أو انفصالاً واسع النطاق للخلايا فقد تم استبعادها وتكرار إجراء الصبغ.
لقياس ATP، تم استزراع الخلايا بكثافة 5 × 10⁵ خلية لكل بئر في 2 mL من وسط الزرع في أطباق ذات 6 آبار. وبعد المعالجة، غُسلت الخلايا مرتين باستخدام 1 mL من PBS مبرد بالثلج، ثم حُللت باستخدام 200 µL من منظم محلول تحلل مقايسة ATP، وجرى طردها مركزياً عند 12,000 × g لمدة 5 min عند 4°C. خُلطت عينة قدرها 10 µL من السائل الطافي مع 100 µL من كاشف الكشف عن ATP، ثم قيست التألق الكيميائي. حُسبت تركيزات ATP من منحنى قياسي. وقيس كل محلول تحلل في مكررات ثنائية، كما حُللت ثلاثة آبار مكررة في كل تجربة من ثلاث تجارب مستقلة.
لتحليل تدفق الكوليسترول، تم استزراع الخلايا بكثافة 5 × 10⁴ خلية لكل بئر في 500 µL من وسط الزرع في أطباق ذات 24 بئراً. وبعد المعالجة، تم تحميل الخلايا بـ 1 µg/mL من NBD-cholesterol لمدة 24 h، ثم غُسلت ثلاث مرات باستخدام 500 µL من PBS، وحُضنت لمدة 4 h في 500 µL من وسط خالٍ من المصل يحتوي إما على 10 µg/mL من apolipoprotein A-I أو 50 µg/mL من high-density lipoprotein. جُمعت السوائل الطافية من المزارع وجرى طردها مركزياً عند 1,000 × g لمدة 5 min. ثم غُسلت الخلايا مرتين باستخدام PBS وحُللت باستخدام 200 µL من محلول التحلل (lysis buffer). وقيس الفلوريسنس (الوميض الفلوري) في السوائل الطافية ونواتج التحلل في عينات مكررة عند أطوال موجية للإثارة والانبعاث تبلغ 485 و 535 nm على التوالي. طُرحت قيم الفلوريسنس التي تم الحصول عليها من الآبار التي لا تحتوي على NBD-cholesterol، وحُسب تدفق الكوليسترول كنسبة فلوريسنس السائل الطافي مقسوماً على مجموع فلوريسنس السائل الطافي ونواتج التحلل × 100 لكل مستقبل كوليسترول.
قياس السيتوكينات الالتهابية، وجهد الغشاء الميتوكوندري، وأنواع الأكسجين التفاعلية، والموت الخلوي المبرمج
بالنسبة لمقايسة الممتز المناعي المرتبط بالإنزيم (ELISA)، تم استزراع خلايا RAW264.7 بكثافة 5 × 10⁵ خلية لكل بئر في 2 mL من الوسط الزرعي في أطباق سداسية الآبار. وبعد 24 ساعة من المعالجة، جُمعت الطافات الزرعية، وجرى طردها مركزياً عند 1,000 × g لمدة 10 دقائق عند 4°C، ثم حُللت فوراً أو قُسمت إلى حصص وخُزنت عند −80°C حتى وقت التحليل. وقد تم تجنب دورات التجميد والإذابة المتكررة. قِيست تركيزات TNF-α وIL-6 وIL-1β للفئران باستخدام أطقم Sandwich ELISA. وجرى موازنة جميع الكواشف مع درجة حرارة الغرفة قبل الاستخدام. ثم وُضعت المعايير والعينات الفارغة والعينات في مكررات بحجم 100 µL لكل بئر. غُسلت الآبار خمس مرات باستخدام 300 µL من محلول الغسيل بعد كل فترة تحضين للأجسام المضادة. تم تحقيق ظهور اللون باستخدام ركيزة tetramethylbenzidine، وأُوقف التفاعل وفقاً لتعليمات الشركة المصنعة، وقِيست الامتصاصية عند 450 nm. حُسبت تركيزات السيتوكينات من منحنيات قياسية لوجستية رباعية المعاملات وعُبر عنها بـ pg/mL. وأُعيدت القياسات التي تجاوزت فيها معاملات الاختلاف للمكررات 15%، كما خُففت العينات التي تجاوزت نطاق المقايسة قبل إعادة تحليلها.
لتحليل جهد الغشاء الميتوكوندري، تم استزراع الخلايا بكثافة 5 × 10⁴ خلية لكل بئر في 500 µL من وسط الاستزراع في أطباق ذات 24 بئراً. وبعد المعالجة، غُسلت الخلايا مرتين وحُضنت مع 500 µL من محلول JC-1 التشغيلي لمدة 20 min عند 37°C في الظلام. ثم غُسلت الخلايا مرتين بمحلول التصبغ المنظم، وتم الحصول على فلورة التجمعات الحمراء والمونومرات الخضراء من مجالات مجهرية متطابقة عند أطوال موجية للاستثارة/الانبعاث تبلغ 525/590 nm و 490/530 nm، على التوالي. وفي وقت لاحق، تم حساب نسبة الفلورة الخضراء إلى الحمراء بعد طرح الخلفية.
لتحليل أنواع الأكسجين التفاعلية (ROS) داخل الخلايا، تم استزراع الخلايا بكثافة 5 × 10⁴ خلية لكل بئر في أطباق ذات 24 بئرًا. وبعد المعالجة، غُسلت الخلايا مرتين بوسط خالٍ من المصل وحُضنت مع 10 µL من 2′,7′-dichlorodihydrofluorescein diacetate المُخفف في 200 µL من وسط استزراع لمدة 2 h عند 37°C في الظلام. وتم رج الأطباق بلطف كل 5 min أثناء الحضن. بعد ذلك، غُسلت الخلايا ثلاث مرات، وقِيس الفلورسنت عند أطوال موجية للإثارة والانبعاث تبلغ 488 و525 nm على التوالي.
لتحليل الموت الخلوي المبرمج (apoptosis)، تم استزراع الخلايا بكثافة 5 × 10⁴ خلية لكل بئر في أطباق ذات 24 بئراً. وبعد المعالجة، غُسلت الخلايا مرتين، ثم ثُبتت باستخدام 4% paraformaldehyde لمدة 20 min، وغُسلت ثلاث مرات، ثم نُفذت عملية النفاذية باستخدام 0.1% Triton X-100 في PBS لمدة 10 min. أُضيف إجمالي 250 µL من خليط تفاعل وسم النهايات المقطوعة بـ dUTP بواسطة إنزيم terminal deoxynucleotidyl transferase (TUNEL)، وحُضنت الخلايا لمدة 60 min عند 37°C في غرفة مظلمة رطبة. وبعد ثلاث غسلات، صُبغت النوى صبغة تباينية باستخدام 4′,6-diamidino-2-phenylindole (DAPI) لمدة 5 min. كما تم تضمين ضابط سلبي يفتقر إلى إنزيم terminal deoxynucleotidyl transferase في كل تجربة.
أشارت الفلورة الحمراء المنقطة لصبغة JC-1 بشكل أساسي إلى الحفاظ على جهد الغشاء الميتوكوندري، بينما أشارت زيادة الفلورة الخضراء المنتشرة إلى إزالة استقطاب الغشاء. وقُبلت صور أنواع الأكسجين التفاعلية (ROS) فقط عندما كانت الفلورة الخضراء داخل الخلايا وخالية من الرواسب أو تشبع الإشارة. كما قُبل تلوين الموت الخلوي المبرمج (Apoptosis) فقط عندما كانت الفلورة الحمراء نووية بشكل أساسي، وأظهرت مجموعة التحكم التي تم فيها حذف الإنزيم حداً أدنى من إشارة الخلفية.
التقاط الصور والتحليل الكمي
تم الحصول على صور المجال المضيء والفلورة باستخدام مجهر فلوري مقلوب مجهز بكاميرا رقمية وعدسة شيئية بقوة 20×. جُمعت خمسة حقول غير متداخلة من كل بئر، بما في ذلك حقل مركزي واحد وأربعة حقول محيطية. استُبعدت المناطق التي تحتوي على خدوش، أو حواف الآبار، أو طبقات خلوية منفصلة، أو حطام كبير قبل الكشف عن هويات المعالجات. تم تعطيل إعدادات التعريض الضوئي والربح التلقائية. حُددت شدة الإضاءة، ووقت التعريض، والربح، والعدسة الشيئية، وأبعاد الصورة باستخدام آبار ممثلة لمجموعة Control وox-LDL لضمان بقاء أقوى إشارة فلورية غير مشبعة. تم الحفاظ على إعدادات متطابقة للحصول على الصور لجميع مجموعات المعالجة ضمن كل تجربة مستقلة. تم الحصول على قنوات الفلورة الحمراء والخضراء المزدوجة دون إعادة تحريك منصة المجهر. حُللت الصور غير المعدلة باستخدام برنامج تحليل الصور ImageJ بينما ظل الباحث متعامياً عن توزيع المعالجات. تم طرح إشارة الخلفية من منطقة خالية من الخلايا، وحُددت عتبات الصور باستخدام صور ممثلة لمجموعة Control وox-LDL. طُبقت العتبات نفسها طوال كل تجربة. طُبقت تعديلات موحدة على الصورة بأكملها فقط لغرض عرض الأشكال. عُبّر عن نتائج JC-1 كنسبة الفلورة الخضراء إلى الحمراء. عُبّر عن إشارات أنواع الأكسجين التفاعلية والاستماتة كمتوسط فلورة مطروح منها الخلفية ومطبع حسب المنطقة التي تم تحليلها، مع تطبيع القيمة المتوسطة لمجموعة Control لتكون 1 للتحليلات النسبية. تم حساب متوسط خمسة حقول مجهرية للحصول على قيمة واحدة لكل بئر، وحُسب متوسط القيم من ثلاثة آبار لإنتاج قيمة واحدة لكل تجربة مستقلة.
تحليل لطخة ويسترن
تم استزراع خلايا RAW264.7 بكثافة 5 × 10⁵ خلية لكل بئر في 2 mL من وسط الاستزراع في أطباق ذات 6 آبار، وتم تحضير محلل بروتيني واحد من كل بئر. ولإجراء استخلاص البروتين من الخلية الكاملة، غُسلت الخلايا مرتين بمحلول PBS بارد (في درجة حرارة الثلج)، ثم حُللت لمدة 30 min على الثلج باستخدام منظم RIPA (radioimmunoprecipitation assay) المدعم بمثبطات البروتياز والفوسفاتاز، ثم طُردت مركزياً عند 12,000 × g لمدة 15 min عند 4°C. ولإجراء استخلاص البروتين النووي، عُلقت الخلايا في منظم يحتوي على 10 mM HEPES، و10 mM KCl، و1.5 mM MgCl2، و0.5 mM dithiothreitol، ومثبطات البروتياز/الفوسفاتاز، وحُضنت على الثلج لمدة 15 min. بعد ذلك، أُضيف منظف غير أيوني ليصل التركيز النهائي إلى 0.5%، متبوعاً برج سريع بجهاز vortex ثم الطرد المركزي عند 700 × g لمدة 5 min عند 4°C. استُخلص الراسب النووي لمدة 30 min على الثلج مع الخلط المتقطع في منظم يحتوي على 20 mM HEPES، و420 mM NaCl، و1.5 mM MgCl2، و0.2 mM EDTA، و25% glycerol، و0.5 mM dithiothreitol، ومثبطات البروتياز/الفوسفاتاز. وفي النهاية، طُرد المستخلص مركزياً عند 14,000 × g لمدة 15 min عند 4°C.
تم تحديد تركيزات البروتين باستخدام مقايسة حمض البيسينكونينيك. تم تحميل كميات متساوية من البروتين (25–30 µg) في كل مسار، ثم سُخنت عند 95°C لمدة 5 min، وفُصلت على هلامات بولي أكريلاميد وبيريدوك سلفات الصوديوم بنسبة 8%–12%، ونُقلت إلى أغشية بولي فينيليدين فلورايد بمسامية 0.45 µm عند 100 V لمدة 90 min تحت ظروف تبريد. تم حجب الأغشية التي تحتوي على البروتينات الكلية باستخدام حليب خالي الدسم بنسبة 5%، بينما حُجبت الأغشية التي تحتوي على البروتينات المفسفرة باستخدام ألبومين المصل البقري بنسبة 5% المُحضر في محلول ملحي منظم بـ Tris يحتوي على بوليسوربات 20 لمدة 1 h. حُضنت الأغشية طوال الليل عند 4°C مع أجسام مضادة أولية ضد AMPK و phosphorylated AMPK و BAX و BCL-2 و caspase-3 و ABCA1 و p65 و phosphorylated p65 و LXRα و IκB-α و phosphorylated IκB-α و histone H3 بتخفيف 1:1,000، باستثناء histone H3 الذي استُخدم بتخفيف 1:2,000. كما استُخدمت الأجسام المضادة لـ GAPDH و β-actin بتخفيف 1:5,000. وبعد تحضين الأجسام المضادة الأولية، غُسلت الأغشية ثلاث مرات لمدة 10 min لكل غسلة، ثم حُضنت لمدة 1 h مع أجسام مضادة ثانوية من الماعز مضادة للأرنب أو من الماعز مضادة للفأر مقترنة ببيروكسيداز الفجل وبتركيز تخفيف 1:5,000. وبعد غسيل إضافي، تم الكشف عن حزم البروتين باستخدام كاشف الكشف بالتألق الكيميائي المعزز. تم اختيار أقصر فترة تعريض تُنتج حزمًا غير مشبعة لجميع البروتينات المستهدفة، مع الحفاظ على إعدادات التعريض واكتساب الصور نفسها لجميع المجموعات على الغشاء ذاته.
تم قياس كمية حزم البروتين باستخدام برنامج تحليل الصور ImageJ بعد طرح الخلفية المحلية. وقد تم تطبيع مستويات Total AMPK وABCA1 وBAX وBCL-2 وcaspase-3 وIκB-α وphosphorylated IκB-α بالنسبة لـ GAPDH أو β-actin. كما تم حساب نسب phosphorylated AMPK إلى total AMPK ونسب phosphorylated p65 إلى total p65. وتم تطبيع مستويات Nuclear LXRα وp65 وphosphorylated p65 بالنسبة إلى histone H3، كما تم تطبيع القيمة المتوسطة لمجموعة Control أو si-NC ضمن كل تجربة مستقلة لتكون 1. وقد شمل التحليل فقط اللطخات التي أظهرت حزمًا منفصلة عند الأوزان الجزيئية المتوقعة، وخلفية منخفضة، وإشارات غير مشبعة، وضوابط تحميل قابلة للمقارنة. أما الأغشية التي أظهرت مسارات مشوهة، أو انتقالًا غير مكتمل للبروتين، أو خلفية مفرطة، أو تشبعًا في الإشارة، فقد تمت إعادة معالجتها أو استبعادها. وقد أُجريت ثلاث تجارب مستقلة باستخدام محللات بروتينية تم تحضيرها بشكل منفصل.
مقايسة الإزاحة الحرارية للخلايا
تم استزراع خلايا RAW264.7 بكثافة 3 × 10⁶ خلية في 10 mL من وسط الزرع في أطباق زرع قطرها 100 mm وحُضنت طوال الليل. حُصدت الخلايا، وغُسلت مرتين باستخدام PBS مبرد بالثلج، ثم تم تحللها لمدة 30 min على الثلج في PBS يحتوي على 0.4% NP-40 ومثبطات البروتياز والفوسفاتاز، ثم طُردت مركزياً عند 20,000 × g لمدة 20 min عند 4°C. عُدلت تركيزات البروتين في المستخلصات المصفاة لتصبح 2 mg/mL. حُضنت أحجام متساوية من المستخلص المصفى إما مع 20 µM PF أو 0.1% DMSO لمدة 1 h في درجة حرارة الغرفة. قُسمت كل عينة إلى حصص بحجم 50 µL وسُخنت لمدة 3 min عند 37°C، أو 41°C، أو 45°C، أو 49°C، أو 53°C، أو 57°C، أو 61°C، أو 65°C، أو 69°C، أو 73°C. بُردت العينات فوراً عند 4°C لمدة 3 min وطُردت مركزياً عند 20,000 × g لمدة 20 min عند 4°C. حُللت أحجام متساوية من الرواسب الطافية الذائبة بواسطة تقنية western blotting للكشف عن AMPK وAMPK المفسفر. عُيرت الإشارة التي تم الحصول عليها عند كل درجة حرارة وفقاً للإشارة المقابلة عند 37°C، والتي اعتُبرت بنسبة 100%. تم رسم وفرة البروتين الذائب كدالة في درجة الحرارة، وكُرّر الاختبار كاملاً ثلاث مرات باستخدام خلايا مُستزرعة بشكل مستقل. شمل التحليل فقط التجارب التي أظهرت حزمة مرجعية قابلة للكشف عند 37°C، وفقداناً تدريجياً لبروتين AMPK الذائب مع زيادة درجة الحرارة، وغياب التشوه الشديد في مسارات الفصل أو الزيادات غير الطبيعية في البروتين الذائب عند أعلى درجات الحرارة.
تحليل التدفق الخلوي
تم استزراع خلايا RAW264.7 بكثافة 5 × 10⁵ خلية لكل بئر في 2 mL من وسط الزرع في أطباق ذات 6 آبار. وبعد المعالجة، غُسلت الخلايا مرتين باستخدام PBS مبرد بالثلج، ثم فُصلت بلطف باستخدام كاشطة الخلايا في PBS يحتوي على 2% من مصل الجنين البقري و 2 mM EDTA. تم طرد مركزي لمعلقات الخلايا عند 400 × g لمدة 5 min عند 4°C، وغُسلت مرتين باستخدام PBS، وضُبطت لتصل إلى تركيز 1 × 10⁶ خلية لكل عينة تقريبًا. صُبغت الخلايا بصبغة حيوية تفاعلية مع الأمينات وقابلة للتثبيت لمدة 20 min في درجة حرارة الغرفة وفي الظلام. وبعد الغسيل، تم حجب مستقبلات Fc باستخدام جسم مضاد anti-mouse CD16/32 لمدة 15 min عند 4°C. أضيفت أجسام مضادة مقترنة بفلوروكروم ضد CD45 و CD11b و F4/80 و CD86 و CD206 بمقدار 5 µL لكل جسم مضاد لكل 1 × 10⁶ خلية، وحُضنت الخلايا لمدة 30 min عند 4°C في الظلام.
بعد صبغ الأجسام المضادة، غُسلت الخلايا مرتين، وأُعيد تعليقها في 300 µL من محلول التصبغ المنظم، ثم حُللت بواسطة قياس التدفق الخلوي. تم الحصول على ما لا يقل عن 50,000 حدث إجمالي، وكلما أمكن، ما لا يقل عن 20,000 حدث من خلايا CD45⁺CD11b⁺F4/80⁺ الحيوية لكل عينة. تضمنت التجارب ضوابط غير مصبوغة، وضوابط تعويض مصبوغة بصبغة واحدة، وضوابط "طرح فلورسنت واحد" (fluorescence-minus-one) لكل من CD86 وCD206. طُبقت مصفوفة التعويض نفسها على جميع مجموعات العلاج ضمن كل تجربة. استُبعدت الحطام الخلوي بناءً على خصائص التشتت الأمامي والجانبي، واستُبعدت الخلايا المزدوجة باستخدام مساحة التشتت الأمامي مقابل ارتفاع التشتت الأمامي. تم تحديد الخلايا السلبية لصبغة الحيوية، وتحديد بوابات (gated) خلايا CD45⁺، وعُرّفت البلاعم بأنها خلايا CD11b⁺F4/80⁺. تم قياس كمية خلايا CD86⁺ وCD206⁺ ضمن بوابة البلاعم باستخدام عتبات تم تحديدها من ضوابط "طرح فلورسنت واحد" المقابلة. طُبق نفس التسلسل الهرمي للبوابات على جميع العينات. تم تحضير معلق خلوي مصبوغ واحد من كل بئر من الآبار الثلاثة المكررة، وحُسب متوسط النسب المئوية التي تم الحصول عليها من الآبار الثلاثة لإنتاج قيمة واحدة لكل تجربة مستقلة. كُررت التجربة ثلاث مرات باستخدام خلايا مستنبتة بشكل مستقل.
السلامة والتخلص من النفايات
أُجريت جميع إجراءات زراعة الخلايا، والتعامل مع ox-LDL، ومعالجة المواد المشتقة من الخلايا داخل كبينة سلامة بيولوجية من الفئة الثانية وفقًا لممارسات المستوى الثاني من السلامة البيولوجية. كما تم ارتداء معاطف المختبر، والقفازات، ووسائل حماية العين طوال جميع الإجراءات. وعُقمت أسطح العمل والمعدات بعد الاستخدام. تم التعامل مع الفورمالدهيد والبارافورمالدهيد باتباع الاحتياطات المناسبة نظرًا لسميتهما وإمكانية تسببهما في السرطان. كما تم التعامل مع المثبتات، ومحاليل Oil Red O، والمحاليل التي تحتوي على DMSO، ومحاليل الصبغ الفلورية باستخدام معدات الوقاية الشخصية المناسبة والتهوية الكافية. وجُمعت المثبتات، ومحاليل الصبغ، والمحاليل التي تحتوي على DMSO، وأوساط الزراعة التي تحتوي على ox-LDL بشكل منفصل، وتخلص منها كنفايات كيميائية خطرة وفقًا للوائح المؤسسة. أما أوساط الزراعة التي تحتوي على خلايا، والمستهلكات الملوثة، وعينات قياس التدفق الخلوي فقد عُوملت كنفايات بيولوجية. وعُقمت النفايات البيولوجية السائلة باستخدام هيبوكلوريت الصوديوم بتركيز 10% المُحضّر حديثًا لمدة 30 min على الأقل، بينما عُقمت النفايات البيولوجية الصلبة بجهاز الأوتوكلاف قبل التخلص منها وفقًا لإجراءات السلامة البيولوجية المؤسسية.
التحليل الإحصائي
أُجريت جميع التحليلات الإحصائية باستخدام برنامج GraphPad Prism الإحصائي (الإصدار 10.1.2). وتُعرض البيانات على شكل المتوسط ± الانحراف المعياري. تمثل قيمة n عدد التجارب المستقلة بدلاً من عدد آبار المكررات التقنية، أو قياسات الأجهزة، أو الحقول المجهرية. واستُخدمت القيم المتوسطة ذات التسلسل الهرمي التي تم الحصول عليها من كل تجربة مستقلة، كما هو موضح في الأقسام السابقة، في جميع التحليلات الإحصائية. أُجريت المقارنات بين مجموعتين باستخدام اختبار Student's t-test غير المقترن ثنائي الذيل. أما المقارنات بين ثلاث مجموعات أو أكثر، فقد أُجريت باستخدام تحليل التباين أحادي الاتجاه (one-way analysis of variance) متبوعاً باختبار Tukey للمقارنات المتعددة. كانت جميع الاختبارات الإحصائية ثنائية الجانب، واعتُبرت قيمة p <0.05 ذات دلالة إحصائية.
النتائج
المركبات النشطة في HQT وأهدافها
تم تحديد ما مجموعه 137 مركباً نشطاً بيولوجياً مرشحاً من HQT من خلال فحص ودمج البيانات التي تم الحصول عليها من قاعدة بيانات TCM Systems Pharmacology. وبعد إزالة المدخلات المكررة، تم الاحتفاظ بـ 391 هدفاً افتراضياً فريداً مرتبطاً بهذه المركبات. وبناءً على ذلك، تم إنشاء شبكة تفاعلات HQT–compound–target باستخدام برنامج Cytoscape الإصدار 3.7.2، كما هو موضح في الشكل 1.
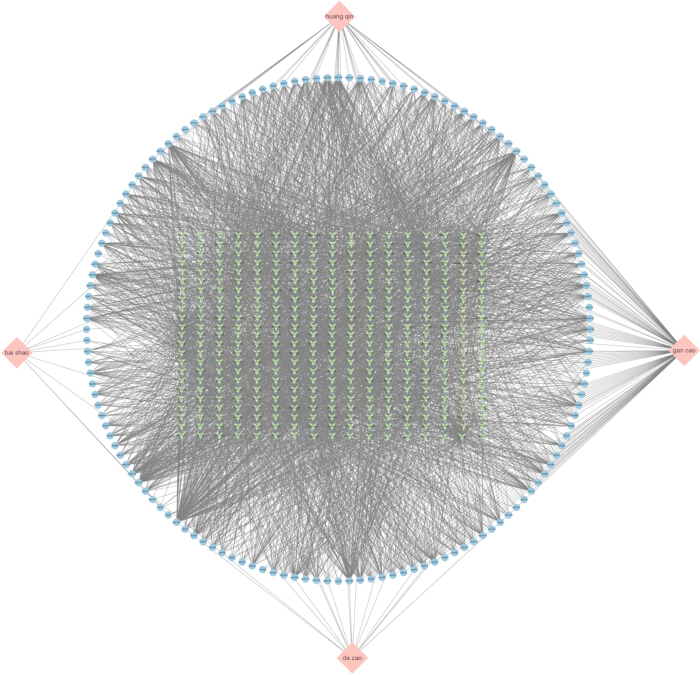
الشكل 1. شبكة التفاعل المتوقعة لمكونات decoction Huangqin Tang والأهداف المحتملة. توضح الشبكة التفاعلات المتوقعة بين المكونات العشبية الأربعة لـ Huangqin Tang (HQT)، والمكونات النشطة بيولوجياً المرشحة، والأهداف الجزيئية المحتملة. تمثل العقد ذات الشكل الماسي الوردي المكونات العشبية الأربعة، وتمثل العقد الدائرية الزرقاء المركبات المرشحة، بينما تمثل العقد الخضراء الأهداف المتوقعة. وتشير الحواف إلى الارتباطات المتوقعة بين العشب والمركب أو بين المركب والهدف. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تحديد الأهداف المرتبطة بتدخل HQT في مرض AS
تم الحصول على بيانات التعبير الجيني من مجموعة البيانات GSE100927 من قاعدة بيانات Gene Expression Omnibus. وقد حدد تحليل التعبير التفاضلي 1,513 جينًا زاد تعبيرها بشكل ملحوظ و922 جينًا انخفض تعبيرها بشكل ملحوظ في عينات الشرايين المصابة بتصلب الشرايين مقارنة بعينات الشرايين الضابطة. ويظهر مخطط البركان والخريطة الحرارية المقابلة في الشكل 2A والشكل 2B، على التوالي. بعد ذلك، تم استرجاع الأهداف المرتبطة بتصلب الشرايين (AS) من قواعد بيانات GeneCards، وOnline Mendelian Inheritance in Man، وComparative Toxicogenomics. وباستخدام عتبة درجة صلة تبلغ ≥1.163، تم الحصول على 600 هدف محتمل من GeneCards، بينما تم استرجاع 188 و64 هدفًا من قاعدتي بيانات Online Mendelian Inheritance in Man وComparative Toxicogenomics، على التوالي، كما هو ملخص في الشكل 2C. وقد أدى دمج الأهداف المستمدة من قواعد البيانات مع الجينات ذات التعبير التفاضلي إلى تحديد 29 هدفًا مرتبطًا بتصلب الشرايين مدعومة بمصدرين من البيانات على الأقل. ثم قورنت هذه الأهداف بالأهداف المتوقعة لـ HQT، مما أسفر عن 12 هدفًا متداخلًا اعتبرت أهدافًا مرشحة يمكن من خلالها أن يمارس HQT تأثيراته على تصلب الشرايين (الشكل 2D).
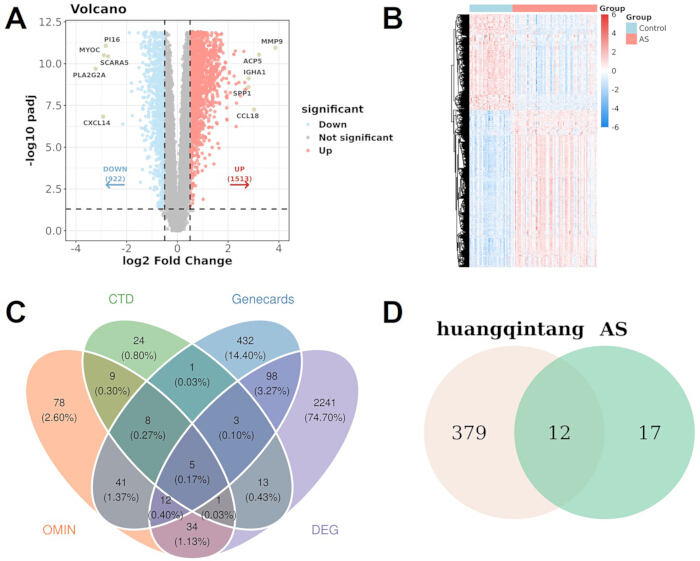
الشكل 2. تحديد الجينات المرتبطة بتصلب الشرايين وتداخلها مع أهداف Huangqin Tang المتوقعة. (A) مخطط بركاني (Volcano plot) يوضح الجينات ذات التعبير المتباين (DEGs) بين عينات الشرايين المصابة بتصلب الشرايين (AS) وعينات الشرايين الضابطة في مجموعة بيانات GSE100927. تمثل النقاط الحمراء والزرقاء الجينات المرتفعة والمنخفضة التعبير على التوالي، بينما تمثل النقاط الرمادية الجينات التي لم تظهر تعبيراً متبايناً بشكل ملحوظ. (B) خريطة حرارية توضح أنماط تعبير الجينات ذات التعبير المتباين (DEGs) في عينات المجموعة الضابطة وعينات تصلب الشرايين (AS). (C) مخطط فين يوضح التداخل بين الجينات المرتبطة بتصلب الشرايين (AS) المستمدة من قاعدة بيانات السموم الجينية المقارنة (Comparative Toxicogenomics Database)، وموقع GeneCards، وموقع Online Mendelian Inheritance in Man، وتحليل DEGs الخاص بمجموعة بيانات GSE100927. (D) مخطط فين يوضح التداخل بين أهداف HQT المتوقعة والأهداف المرتبطة بتصلب الشرايين (AS) التي تم الاحتفاظ بها من مصدرين على الأقل في اللوحة C. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
شبكة التفاعلات البروتينية-البروتينية وتحليلات الإثراء الوظيفي للأهداف المرشحة
لتوصيف التفاعلات والأهمية البيولوجية للأهداف المتداخلة الـ 12، تم بناء شبكة تفاعلات بروتين-بروتين (PPI) باستخدام قاعدة بيانات STRING، ومن ثم تصورها وتحليلها في برنامج Cytoscape. احتوت الشبكة على عدة أهداف مرتبطة ارتباطاً وثيقاً باستقلاب الدهون، والالتهاب الوعائي، وتصلب الشرايين (AS)، بما في ذلك NOS3 وOLR1 وALOX5 وSPP1 وESR1 وIL10 وTNF وVCAM1 (الشكل 3A). مثلت العقد الأكبر والأغمق لوناً الأهداف ذات الأهمية الطوبولوجية الأكبر داخل الشبكة، مما يشير إلى أن هذه البروتينات قد تشغل مواقع مركزية نسبياً في شبكة الأهداف المحتملة لـ HQT ضد تصلب الشرايين (AS). ولتوصيف الوظائف البيولوجية ومسارات الإشارات المرتبطة بهذه الأهداف بشكل أكبر، تم إجراء تحليلات إثراء الوجود الجيني (GO) وموسوعة كيوتو للجينات والجينوم (KEGG). أظهر تحليل العملية البيولوجية (BP) في GO أن الأهداف ارتبطت بشكل أساسي بعمليات استقلاب الستيرويدات، والاستجابات للهرمونات الستيرويدية ومستويات المغذيات، وتنظيم التوازن الدهني (الشكل 3B). وأشار تحليل المكون الخلوي (CC) في GO إلى إثراء سائد في الطوافات الغشائية والمجالات الغشائية الدقيقة ذات الصلة (الشكل 3C)، بينما كشف تحليل الوظيفة الجزيئية (MF) في GO عن إثراء في نشاط مستقبل جزيئات البروتين الدهني منخفض الكثافة، ونشاط مستقبل جزيئات البروتين الدهني، وارتباط البروتياز، ونشاط السيتوكينات، ونشاط المستقبلات النووية، ونشاط عوامل النسخ المعدلة باللجين، ونشاط مستقبل الشحنة، وارتباط المنظم المشارك للنسخ، وارتباط المستقبل النووي، وارتباط الإنتغرين (الشكل 3D). كما أظهر تحليل مسارات KEGG إثراءً معنوياً في المسارات المتعلقة باستقلاب الدهون، وتصلب الشرايين (AS)، والتنظيم الاستقلابي، بما في ذلك مسار الدهون وتصلب الشرايين، ومسار إشارات نواتج السكر النهائية المتقدمة-مستقبل نواتج السكر النهائية المتقدمة (AGE–RAGE) في مضاعفات السكري، ومسار إشارات AMPK (الشكل 3E). وبشكل عام، أشارت شبكة PPI وتحليلات الإثراء إلى أن الأهداف المرشحة قد تشارك في تنظيم التوازن الدهني، وإشارات الالتهاب، واستقلاب الطاقة. وبوجه خاص، وفر إثراء مسار إشارات AMPK مبرراً لفحص تأثيرات PF المرتبطة بـ AMPK مخبرياً في وقت لاحق.
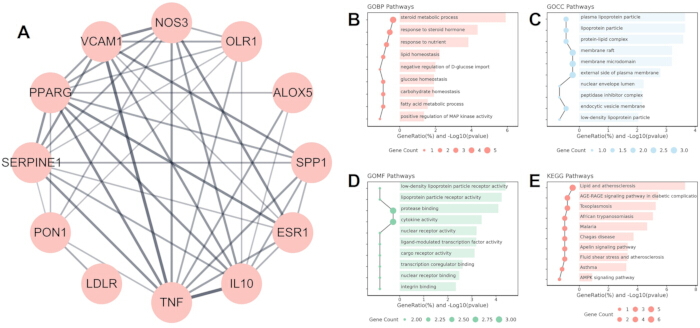
الشكل 3. شبكة التفاعل بين البروتينات وتحليل الإثراء الوظيفي للأهداف المشتركة بين Huangqin Tang وتصلب الشرايين. (A) شبكة التفاعل بين البروتينات للأهداف المشتركة بين HQT وAS. تمثل العقد البروتينات، وتمثل الحواف الارتباطات المتوقعة أو الموثقة بين البروتينات. (B) تحليل إثراء العمليات البيولوجية وفقاً لـ Gene Ontology. (C) تحليل إثراء المكونات الخلوية وفقاً لـ Gene Ontology. (D) تحليل إثراء الوظائف الجزيئية وفقاً لـ Gene Ontology. (E) تحليل إثراء المسارات وفقاً لـ Kyoto Encyclopedia of Genes and Genomes. يمثل حجم النقطة عدد الجينات المثرية، وتمثل الأشرطة الأفقية أهمية الإثراء المقابلة ونسبة الجينات، كما هو موضح على المحاور. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
يعمل كل من PF وHQT على تنشيط AMPK وممارسة تأثيرات وقائية ضد خلل وظائف الخلايا البلعمية الناجم عن ox-LDL
لتحديد التركيزات المناسبة للتجارب اللاحقة، تم أولاً تقييم تأثيرات PF وHQT على حيوية خلايا RAW264.7. ولم يؤثر العلاج بـ PF بتركيزات تتراوح من 1 إلى 40 µM بشكل ملحوظ على حيوية الخلايا مقارنة بمجموعة التحكم غير المعالجة (الشكل 4A). وبالمثل، لم يؤدِّ HQT بتركيزات تتراوح من 12.5 إلى 200 µg/mL إلى انخفاض واضح في حيوية الخلايا (الشكل 4B). وأشارت هذه النتائج إلى أن التركيزات المختبرة من PF وHQT كانت مقبولة بشكل عام من قبل بلعميات RAW264.7. أُجري بعد ذلك تحليل Western blot لتقييم تأثيرات PF وHQT على تنشيط AMPK. وظل التعبير الكلي لـ AMPK مستقراً نسبياً بين مجموعات العلاج المختلفة، بينما زاد PF من نسبة p-AMPK/AMPK بطريقة مرتبطة بالتركيز. كما عزز العلاج بـ HQT فسفرة AMPK عند التركيزات المختبرة (الشكل 4C). وبناءً على الحفاظ على حيوية الخلايا وتنشيط AMPK الملاحظ، تم اختيار 20 µM من PF و100 µg/mL من HQT للتجارب المقارنة اللاحقة. وأظهر صبغ Oil Red O أن التعرض لـ ox-LDL زاد بشكل ملحوظ من تراكم الدهون داخل خلايا RAW264.7. وقد أدى العلاج إما بـ PF أو HQT إلى تقليل المساحة الإيجابية لصبغ Oil Red O بشكل كبير مقارنة بمجموعة ox-LDL (الشكل 4D). وبالتوازي مع ذلك، أدى التعرض لـ ox-LDL إلى ضعف تدفق الكوليسترول بوساطة ApoA-I وبوساطة HDL. وقد استعاد العلاج بـ PF كلا الشكلين من تدفق الكوليسترول بشكل ملحوظ، وأحدث HQT تحسناً مماثلاً في تصدير الكوليسترول الخلوي (الشكل 4E،F). كما أدى التعرض لـ ox-LDL إلى زيادة ملحوظة في إفراز السيتوكينات المحرضة للالتهاب TNF-α وIL-6 وIL-1β. وقد قلل العلاج بـ PF بشكل كبير من تركيزات السيتوكينات الثلاثة في الطافي الزرعي. وبالمثل، خفف العلاج بـ HQT من إفراز السيتوكينات الناجم عن ox-LDL (الشكل 4G). وبشكل جماعي، تشير هذه النتائج إلى أن PF يعيد إنتاج العديد من التأثيرات الوقائية الملاحظة مع مستحضر HQT الكامل، بما في ذلك تنشيط AMPK، وتقليل تراكم الدهون، وتعزيز تدفق الكوليسترول، وتثبيط الاستجابات الالتهابية. وتدعم هذه النتائج اختيار PF كمكون نشط بيولوجياً في HQT لإجراء تحقيقات ميكانيكية لاحقة.
تم إجراء مقايسة الإزاحة الحرارية الخلوية (CETSA) لتقييم ما إذا كان PF يؤثر على الاستقرار الحراري لـ AMPK. ومع زيادة درجة حرارة الحضانة، انخفضت المستويات القابلة للكشف من AMPK وAMPK المفسفر تدريجياً في كل من العينات المعالجة بالمركبة والعينات المعالجة بـ PF. ومع ذلك، أدى العلاج بـ PF إلى زيادة الاحتفاظ بـ AMPK وp-AMPK عند درجات حرارة عدة مقارنة بالعينات المقابلة المعالجة بالمركبة (الشكل 4H,I). تشير هذه النتائج إلى أن PF يعزز الاستقرار الحراري لـ AMPK، وهي نتائج تتفق مع إمكانية الارتباط المستهدف بين PF وAMPK. وبناءً على هذه النتائج، بحثت التجارب اللاحقة فيما إذا كان التثبيط الدوائي أو الجيني لـ AMPK يضعف التأثيرات الوقائية لـ PF في البلاعم المعالجة بـ ox-LDL.
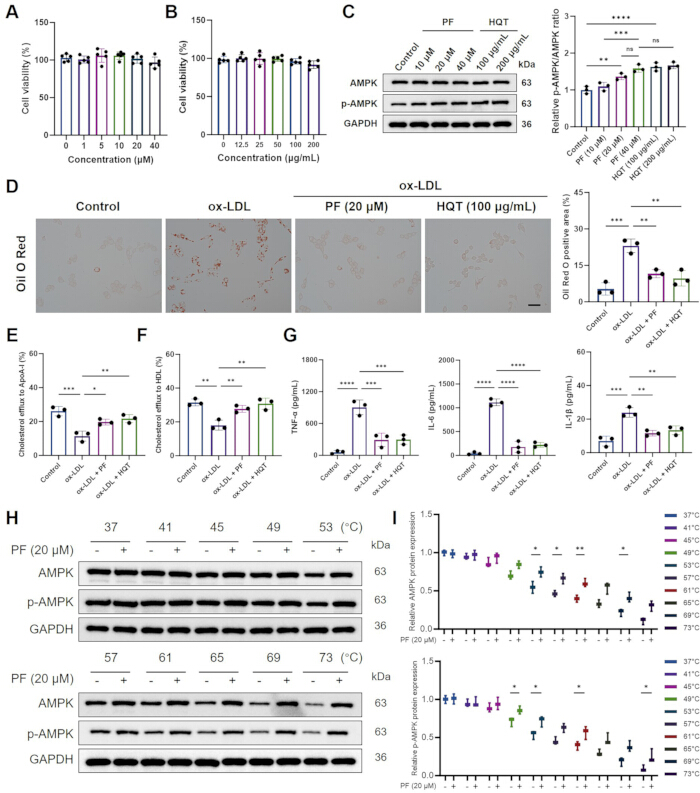
الشكل 4. يعمل كل من Paeoniflorin وHuangqin Tang على تنشيط AMPK وتخفيف خلل وظائف الخلايا البلعمية الناجم عن البروتينات الدهنية منخفضة الكثافة المؤكسدة. (A) حيوية خلايا RAW264.7 بعد المعالجة بالتركيزات الموضحة من paeoniflorin (PF; n = 5). (B) حيوية الخلايا بعد المعالجة بالتركيزات الموضحة من مستخلص HQT (n = 5). (C) لطخات ويسترن ممثلة لـ AMPK وAMPK المفسفر وتقدير كمي لنسبة p-AMPK/AMPK بعد المعالجة بـ PF أو HQT (n = 3). تم استخدام GAPDH كضابط تحميل. (D) صور ممثلة لصبغة Oil Red O وتقدير كمي لتراكم الدهون داخل الخلايا (n = 3). شريط المقياس = 100 µm. (E) تدفق الكوليسترول بوساطة Apolipoprotein A-I (n = 3). (F) تدفق الكوليسترول بوساطة البروتينات الدهنية عالية الكثافة (n = 3). (G) تركيزات TNF-α وIL-6 وIL-1β في supernatants المزارع الخلوية المقاسة بواسطة ELISA (n = 3). (H) لطخات ممثلة لمقايسة الإزاحة الحرارية الخلوية لـ AMPK وp-AMPK بعد الحضن في درجات الحرارة الموضحة في غياب أو وجود PF. تم استخدام GAPDH كضابط تحميل. (I) التقدير الكمي للاستقرار الحراري لـ AMPK وp-AMPK (n = 3). البيانات معروضة كالمتوسط ± SD. تشير الدلالة الإحصائية إلى *P < 0.05، و**P < 0.01، و***P < 0.001، و****P < 0.0001. تحدد الأشرطة الأفقية المقارنات الزوجية المختبرة. في اللوحة C، كانت المقارنات الموضحة هي المجموعة الضابطة مقابل PF (20 µM)، وPF (10 µM) مقابل PF (40 µM)، وPF (20 µM) مقابل PF (40 µM)، والمجموعة الضابطة مقابل HQT (100 µg/mL)، وPF (40 µM) مقابل HQT (200 µg/mL). في اللوحات D–G، كانت المقارنات الموضحة هي المجموعة الضابطة مقابل ox-LDL، وox-LDL مقابل ox-LDL + PF، وox-LDL مقابل ox-LDL + HQT. في اللوحة I، تمت مقارنة العينات المعالجة بالمركبة (vehicle) وتلك المعالجة بـ PF عند كل درجة حرارة يشير إليها شريط أفقي. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
يقلل PF من تراكم الدهون وإفراز السيتوكينات الالتهابية ويعيد مستويات ATP داخل الخلايا في خلايا RAW264.7 المعالجة بـ ox-LDL
أظهر صبغ Oil Red O أن المعالجة بـ ox-LDL أدت إلى تراكم ملحوظ للدهون داخل الخلايا وتكوين خلايا رغوية في خلايا RAW264.7، وهو ما ظهر في وجود العديد من قطيرات الدهون المصبوغة بكثافة مقارنة بمجموعة الضبط (الشكل 5A،B). وقد أدت المعالجة بـ PF إلى تقليل كل من عدد ومساحة المنطقة المصبوغة لقطيرات الدهون بشكل كبير مقارنة بمجموعة ox-LDL. وبما يتفق مع هذا التحسن في تراكم الدهون، خفف PF أيضاً من الاستجابة الالتهابية الناجمة عن ox-LDL. فقد ارتفعت مستويات TNF-α وIL-6 وIL-1β في السوائل الطافية للمزرعة بشكل ملحوظ بعد التعرض لـ ox-LDL، ولكنها انخفضت بشكل كبير نتيجة المعالجة بـ PF (الشكل 5C–E). بالإضافة إلى ذلك، قلل ox-LDL بشكل كبير من مستويات ATP داخل الخلايا، بينما استعاد PF محتوى ATP جزئياً، مما يشير إلى تحسن في حالة الطاقة الخلوية (الشكل 5F). كما أضعف ox-LDL تدفق الكوليسترول بوساطة ApoA-I وتدفق الكوليسترول بوساطة HDL، بينما عزز PF كلا شكلي تدفق الكوليسترول بشكل كبير مقارنة بمجموعة ox-LDL (الشكل 5G،H). وقد أدت المعالجة المشتركة مع مثبط AMPK وهو dorsomorphin إلى تخفيف كل من هذه التأثيرات لـ PF جزئياً، مما أدى إلى زيادة تراكم الدهون ومستويات السيتوكينات المحفزة للالتهاب، بالإضافة إلى تقليل محتوى ATP وتدفق الكوليسترول، مقارنة بالمعالجة بـ PF وحده (الشكل 5B–H). وإجمالاً، تشير هذه النتائج إلى أن PF يخفف من الاضطرابات التي يسببها ox-LDL في التعامل مع الدهون والاستجابات الالتهابية والتوازن الطاقي الخلوي في خلايا RAW264.7، مع احتمال مساهمة إشارات AMPK في هذه التأثيرات الوقائية المنسقة.
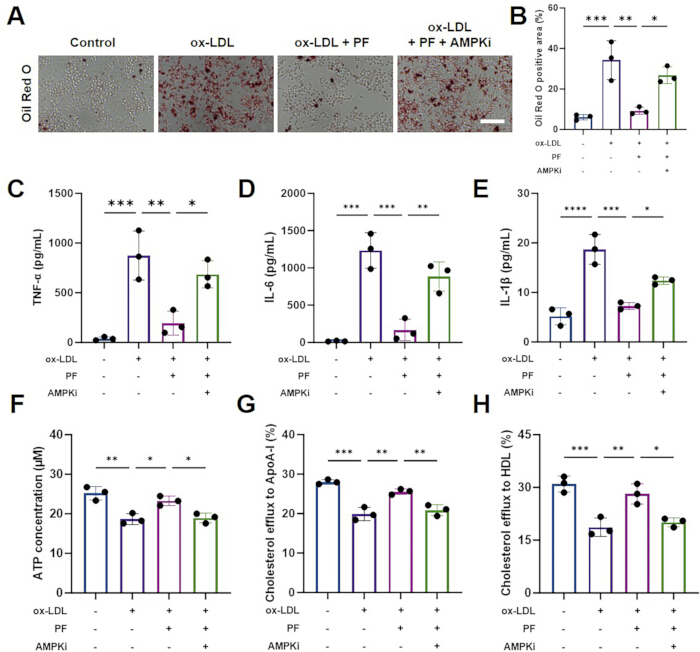
الشكل 5. تثبيط AMPK يضعف من تقليل الالتهاب وتراكم الدهون الذي يحفزه paeoniflorin، كما يقلل من التحسينات في محتوى ATP وتدفق الكوليسترول. (A) صور تمثيلية لصبغة Oil Red O لخلايا RAW264.7. شريط المقياس = 100 µm. (B) قياس كمي للمساحة الإيجابية لصبغة Oil Red O (n = 3). (C–E) تركيزات TNF-α و IL-6 و IL-1β، على التوالي، في المزارع الفائقة التي تم قياسها بواسطة ELISA (n = 3). (F) تركيز ATP داخل الخلايا (n = 3). (G) تدفق الكوليسترول بوساطة Apolipoprotein A-I (n = 3). (H) تدفق الكوليسترول بوساطة البروتينات الدهنية عالية الكثافة (n = 3). يشير AMPKi إلى مثبط AMPK وهو dorsomorphin. البيانات معروضة كمتوسط ± SD لثلاث تجارب مستقلة. تتم الإشارة إلى الدلالة الإحصائية بـ *P < 0.05، و **P < 0.01، و ***P < 0.001، و ****P < 0.0001. تحدد الأشرطة الأفقية المقارنات الزوجية المختبرة. في اللوحات B–H، كانت المقارنات المحددة هي Control مقابل ox-LDL، و ox-LDL مقابل ox-LDL + PF، و ox-LDL + PF مقابل ox-LDL + PF + AMPKi. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
يقلل PF من الخلل الوظيفي في الميتوكوندريا والإجهاد التأكسدي وموت الخلايا المبرمج الناجم عن ox-LDL
أظهر صبغ TUNEL أن ox-LDL أدى إلى زيادة ملحوظة في فلورة TUNEL في خلايا RAW264.7، مما يشير إلى تعزيز الموت الخلوي المبرمج، بينما أدى العلاج بـ PF إلى تقليل فلورة TUNEL المستحثة بـ ox-LDL بشكل كبير. وقد أدى العلاج المشترك باستخدام dorsomorphin، وهو مثبط لـ AMPK، إلى عكس التأثير المضاد للموت الخلوي المبرمج لـ PF جزئيًا (الشكل 6A،ب). وبشكل متسق، أدى ox-LDL إلى زيادة مستويات ROS داخل الخلايا بشكل ملحوظ، كما دل على ذلك تعزيز فلورة DCFH-DA، بينما خفض PF تراكم ROS بشكل كبير؛ وقد عُكس هذا التأثير المضاد للأكسدة جزئيًا بواسطة dorsomorphin (الشكل 6 ج،د). أظهر صبغ JC-1 كذلك أن المعالجة بـ ox-LDL أدت إلى خفض فلورة تجمعات JC-1 الحمراء وزيادة فلورة مونومرات JC-1 الخضراء، مما أدى إلى زيادة ملحوظة في نسبة الفلورة الخضراء إلى الحمراء، وهو ما يشير إلى إزالة استقطاب الغشاء الميتوكوندري. وقد قللت المعالجة بـ PF بشكل ملحوظ من نسبة الفلورة الخضراء إلى الحمراء، في حين أدت المعالجة المشتركة مع dorsomorphin إلى عكس هذا التأثير جزئياً. (الشكل 6E،إفوتشير هذه النتائج مجتمعة إلى أن PF يخفف من زوال استقطاب الغشاء الميتوكوندري، والإنتاج المفرط لجزيئات ROS، والموت الخلوي المبرمج في خلايا RAW264.7 الناتجة عن ox-LDL، مع احتمال مساهمة مسار إشارات AMPK في هذه التأثيرات الوقائية.
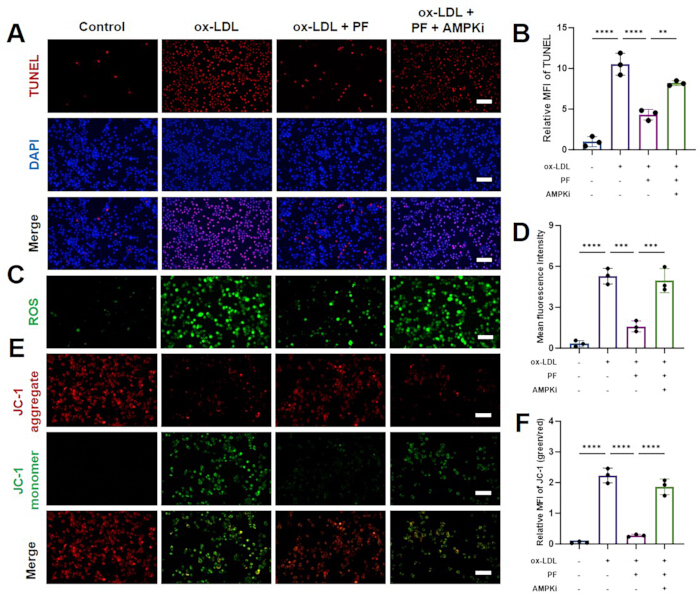
الشكل 6يؤدي تثبيط AMPK إلى تخفيف آثار البايونيفلورين (paeoniflorin) على الموت الخلوي المبرمج والإجهاد التأكسدي وفقدان جهد غشاء الميتوكوندريا المستحث بواسطة البروتينات الدهنية منخفضة الكثافة المؤكسدة. (أ) مقايسة TUNEL للكشف عن الموت الخلوي المبرمج في خلايا RAW264.7 (مقياس الرسم = 100 µm) و (ب) التحليل الكمي المقابل (العدد = 3). (ج) صبغ أنواع الأكسجين التفاعلية (ROS) في خلايا RAW264.7 (شريط المقياس = 100 μm) و (د) النتائج الكمية (العدد = 3). (هـ) تلوين JC-1 لخلايا RAW264.7 (شريط المقياس = 100 μm(هـ) و (و) التحليل الكمي المقابل (العدد = 3). تُعرض البيانات كمتوسط حسابي ± الانحراف المعياري لثلاث تجارب مستقلة. ويُشار إلى الدلالة الإحصائية بـ *P < 0.05, **P < 0.01, ***P < 0.001، و****P < 0.0001. تحدد الأشرطة الأفقية المقارنات الزوجية التي تم اختبارها. في اللوحات B وD وF، كانت المقارنات الموضحة هي: المجموعة الضابطة مقابل ox-LDL، وox-LDL مقابل ox-LDL + PF، وox-LDL + PF مقابل ox-LDL + PF + AMPKi. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تثبيط AMPK يخفف التغيرات المرتبطة بـ PF في ABCA1 والبروتينات المرتبطة بموت الخلايا المبرمج
أظهر تحليل Western blot أن الوفرة الإجمالية لبروتين AMPK ظلت مستقرة نسبيًا عبر مجموعات العلاج، بينما أدى ox-LDL إلى زيادة معنوية في نسبة p-AMPK/AMPK وانخفاض في تعبير ABCA1 مقارنة بمجموعة التحكم. كما أدى العلاج بـ PF إلى زيادة إضافية في نسبة p-AMPK/AMPK واستعادة تعبير ABCA1 بالنسبة لمجموعة ox-LDL. وقد أدى العلاج المشترك باستخدام مثبط AMPK dorsomorphin إلى تخفيف هذه التغييرات المرتبطة بـ PF بشكل معنوي، مما أدى إلى نسبة p-AMPK/AMPK أقل وتعبير ABCA1 منخفض مقارنة بما لوحظ في مجموعة ox-LDL + PF (الشكل 7A,B). وأظهر تحليل البروتينات المرتبطة بموت الخلايا المبرمج أن ox-LDL زاد بشكل معنوي من التعبير الإجمالي لـ caspase-3 وخفض نسبة BCL-2/BAX مقارنة بمجموعة التحكم. كما قلل العلاج بـ PF بشكل معنوي من التعبير الإجمالي لـ caspase-3 وزاد من نسبة BCL-2/BAX بالنسبة لمجموعة ox-LDL. وعكس العلاج المشترك بـ Dorsomorphin هذه التغييرات المرتبطة بـ PF، مما أدى إلى زيادة التعبير الإجمالي لـ caspase-3 وانخفاض نسبة BCL-2/BAX مقارنة بمجموعة ox-LDL + PF (الشكل 7C,D). وتشير هذه النتائج إلى أن تثبيط AMPK يخفف من تأثيرات PF على تعبير ABCA1 وملفات البروتينات المرتبطة بموت الخلايا المبرمج في خلايا RAW264.7 المعالجة بـ ox-LDL.
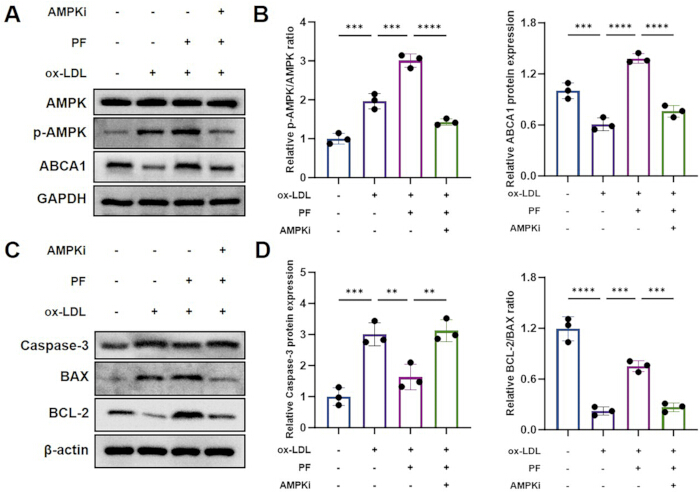
الشكل 7. تثبيط AMPK يقلل من التغيرات المرتبطة بالبايونيفلورين في فسفرة AMPK، وتعبير ABCA1، والبروتينات المرتبطة بموت الخلايا المبرمج. (أ) لطخات وسترن ممثلة لـ AMPK و p-AMPK وناقل كاسيت ربط ATP 1 (ABCA1). استُخدم GAPDH كضابط تحميل. (ب) تقدير كمي لنسبة p-AMPK/AMPK والتعبير النسبي لبروتين ABCA1 (n = 3). (ج) لطخات وسترن ممثلة لـ total caspase-3 و BAX و BCL-2. استُخدم β-Actin كضابط تحميل. (د) تقدير كمي للتعبير النسبي لـ total caspase-3 ونسبة BCL-2/BAX (n = 3). يشير AMPKi إلى مثبط AMPK المسمى دورسومورفين. يتم عرض البيانات كمتوسط ± الانحراف المعياري لثلاث تجارب مستقلة. يشار إلى الدلالة الإحصائية بـ *P < 0.05، و **P < 0.01، و ***P < 0.001، و ****P < 0.0001. تحدد الأشرطة الأفقية المقارنات الزوجية التي تم اختبارها. بالنسبة لكلتا النتيجتين الكميتين في اللوحتين ب و د، كانت المقارنات المحددة هي المجموعة الضابطة مقابل ox-LDL، و ox-LDL مقابل ox-LDL + PF، و ox-LDL + PF مقابل ox-LDL + PF + AMPKi. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
يؤدي إسكات AMPK إلى تخفيف الزيادات المرتبطة بـ PF في وفرة LXRα النووي وتثبيط إشارات NF-κB في خلايا RAW264.7 المعالجة بـ ox-LDL
لمزيد من التحديد لمدى تورط AMPK في تأثيرات PF، تم إسكات تعبير AMPK باستخدام siRNA. وقد انخفضت مستويات كل من mRNA وبروتين AMPK بشكل ملحوظ في الخلايا المنقولة بـ si-AMPK مقارنة بمجموعة si-NC، مما يؤكد كفاءة عملية الإسكات (الشكل 8A،B). أدى PF إلى زيادة تعبير LXRα النووي وخفض نسبة p-p65/p65 النووية في الخلايا المعالجة بـ ox-LDL، بينما أدى إسكات AMPK إلى إضعاف هذه التأثيرات بشكل ملحوظ (الشكل 8C،D). وبشكل متسق، أدى ox-LDL إلى زيادة ملحوظة في نسبة p-p65/p65 في الخلية بأكملها، وهو ما تم تثبيطه بواسطة PF ولكن استعيد جزئيًا بعد إسكات AMPK (الشكل 8E). كما عكس PF الانخفاض الناجم عن ox-LDL في تعبير IκB-α والزيادة في تعبير p-IκB-α، بينما تم إضعاف هذه التأثيرات بواسطة si-AMPK (الشكل 8F). وبشكل جماعي، تشير هذه النتائج إلى أن AMPK يساهم في الزيادة التي يتوسطها PF في وفرة LXRα النووية وتثبيط إشارات NF-κB.
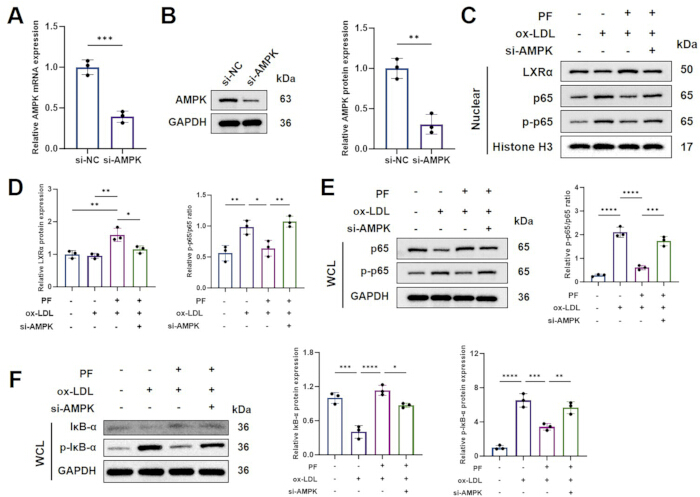
الشكل 8. إسكات AMPK يقلل من الزيادات التي يحفزها paeoniflorin في وفرة LXRα النووية وتثبيط إشارات NF-κB. (A) التعبير النسبي لـ mRNA الخاص بـ AMPK بعد عفن (transfection) باستخدام siRNA ضابط سلبي أو siRNA يستهدف AMPK (n = 3). (B) لطخة ويسترن (western blot) نموذجية وتقدير كمي للتعبير البروتيني لـ AMPK بعد عفن siRNA (n = 3). استُخدم GAPDH كضابط تحميل. (C) لطخات ويسترن نموذجية لكل من LXRα النووي، وp65، وp-p65. استُخدم الهيستون H3 كضابط تحميل نووي. (D) التقدير الكمي للتعبير النسبي لـ LXRα النووي ونسبة p-p65/p65 النووية (n = 3). (E) لطخات ويسترن نموذجية لـ p65 وp-p65 في الخلية بأكملها، وتقدير كمي لنسبة p-p65/p65 (n = 3). استُخدم GAPDH كضابط تحميل. (F) لطخات ويسترن نموذجية لـ IκB-α وp-IκB-α في الخلية بأكملها والتحليلات الكمية المقابلة (n = 3). استُخدم GAPDH كضابط تحميل. تُمثل البيانات كمتوسط ± SD لثلاث تجارب مستقلة. يُشار إلى الدلالة الإحصائية بـ *P < 0.05، و**P < 0.01، و*** P < 0.001، و**** P < 0.0001. تحدد الأشرطة الأفقية المقارنات الزوجية التي تم اختبارها. في اللوحتين A وB، تمت مقارنة si-NC مع si-AMPK. بالنسبة للتعبير عن LXRα النووي في اللوحة D، كانت المقارنات المحددة هي Control مقابل ox-LDL + PF، وox-LDL مقابل ox-LDL + PF، وox-LDL + PF مقابل ox-LDL + PF + si-AMPK. بالنسبة لنسبة p-p65/p65 النووية في اللوحة D والتحليلات الكمية في اللوحتين E وF، كانت المقارنات المحددة هي Control مقابل ox-LDL، وox-LDL مقابل ox-LDL + PF، وox-LDL + PF مقابل ox-LDL + PF + si-AMPK. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تثبيط AMPK يقلل من تدفق الكوليسترول بوساطة PF وتعديل النمط الظاهري للبلاعم
لتحديد ما إذا كان التثبيط الدوائي لـ NF-κB قد أحدث تغييرات وظيفية مماثلة لتلك المرتبطة بـ PF، تم تقييم تعبير ABCA1، وتدفق الكوليسترول، وتراكم الدهون، ومؤشرات النمط الظاهري للخلايا البلعمية. وقد أدى PF إلى استعادة تعبير ABCA1 وتعزيز تدفق الكوليسترول بوساطة ApoA-I وHDL في الخلايا المعالجة بـ ox-LDL، بينما أدى إسكات AMPK إلى إضعاف هذه التأثيرات بشكل ملحوظ (الشكل 9A–C). وبشكل متسق، قلل PF من تراكم الدهون داخل الخلايا، في حين أن si-AMPK عكس هذا التأثير جزئيًا (الشكل 9D،E). وأنتج العلاج بـ BAY 11-7082 تغييرات مماثلة لتلك التي أحدثها PF، بما في ذلك زيادة تعبير ABCA1 وتدفق الكوليسترول وانخفاض تراكم الدهون داخل الخلايا (الشكل 9A–E). تم إجراء تحليل التدفق الخلوي باستخدام استراتيجية البوابة الموضحة في الشكل 9F. وقد زاد ox-LDL بشكل ملحوظ من نسبة الخلايا البلعمية الإيجابية لـ CD86، بينما قلل PF من هذه المجموعة؛ وقد تم إضعاف هذا التأثير عن طريق إسكات AMPK (الشكل 9G،H). وفي المقابل، زاد PF من نسبة الخلايا البلعمية الإيجابية لـ CD206، وهو ما عكسه si-AMPK جزئيًا (الشكل 9I،J). وبالمثل، قلل BAY 11-7082 من نسبة الخلايا البلعمية الإيجابية لـ CD86 وزاد من نسبة الخلايا البلعمية الإيجابية لـ CD206 (الشكل 9G–J). وتشير هذه النتائج إلى أن AMPK يساهم في تأثيرات PF على التوازن الكوليسترولي وتعديل النمط الظاهري للخلايا البلعمية، وربما يكون ذلك من خلال تنظيم إشارات NF-κB.
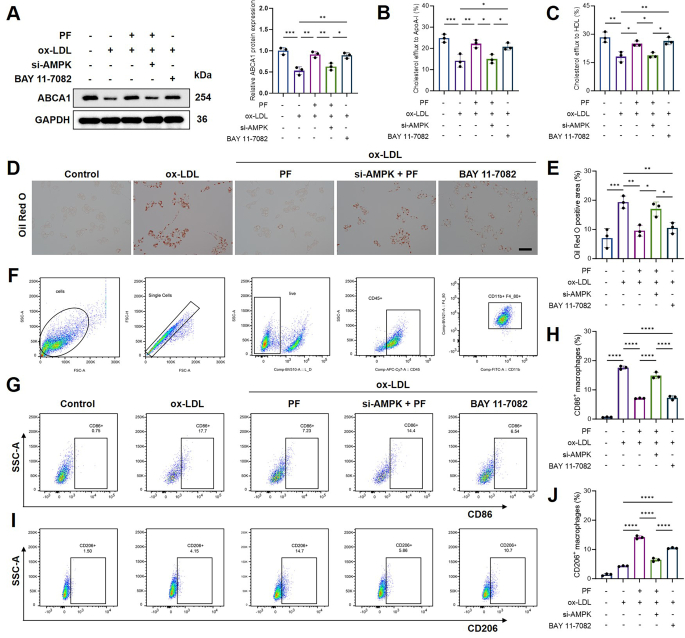
الشكل 9. إسكات AMPK وتثبيط NF-κB ينظمان تدفق الكوليسترول المرتبط بـ paeoniflorin، وتراكم الدهون، والنمط الظاهري للبلاعم. (A) تحليل ويسترن بلوت (western blot) ممثل وتقدير كمي لتعبير ABCA1 (n = 3). استُخدم GAPDH كضابط تحميل. (B) تدفق الكوليسترول بوساطة Apolipoprotein A-I (n = 3). (C) تدفق الكوليسترول بوساطة البروتينات الدهنية عالية الكثافة (n = 3). (D) صور ممثلة لصبغة Oil Red O. شريط المقياس = 100 µm. (E) تقدير كمي للمساحة الموجبة لصبغة Oil Red O (n = 3). (F) استراتيجية بوابات قياس التدفق الخلوي المتسلسلة المستخدمة لتحديد الخلايا، والخلايا المفردة، والخلايا الحية الموجبة لـ CD45، والبلاعم الموجبة لـ CD11b/F4/80. (G) مخططات قياس التدفق الخلوي ممثلة للبلاعم الموجبة لـ CD86. (H) تقدير كمي للبلاعم الموجبة لـ CD86 (n = 3). (I) مخططات قياس التدفق الخلوي ممثلة للبلاعم الموجبة لـ CD206. (J) تقدير كمي للبلاعم الموجبة لـ CD206 (n = 3). استُخدم BAY 11-7082 كمثبط لـ NF-κB. البيانات معروضة كالمتوسط ± SD لثلاث تجارب مستقلة. يُشار إلى الدلالة الإحصائية بـ *P < 0.05، **P < 0.01، ***P < 0.001، و ****P < 0.0001. تحدد الأشرطة الأفقية المقارنات الزوجية المختبرة. في اللوحات A–C و E و H، كانت المقارنات المحددة هي Control مقابل ox-LDL، و ox-LDL مقابل ox-LDL + PF، و ox-LDL + PF مقابل ox-LDL + PF + si-AMPK، و ox-LDL + PF + si-AMPK مقابل ox-LDL + BAY 11-7082، و ox-LDL مقابل ox-LDL + BAY 11-7082. في اللوحة J، كانت المقارنات المحددة هي ox-LDL مقابل ox-LDL + PF، و ox-LDL + PF مقابل ox-LDL + PF + si-AMPK، و ox-LDL + PF + si-AMPK مقابل ox-LDL + BAY 11-7082، و ox-LDL مقابل ox-LDL + BAY 11-7082. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
توفر البيانات:
تتوفر مجموعة بيانات المصفوفات الدقيقة (microarray) المتاحة للعموم والتي تم تحليلها في هذه الدراسة عبر أرشيف تعبير الجينات (GEO) التابع للمركز الوطني لمعلومات التقانة الحيوية (NCBI) تحت رقم الوصول GSE100927. كما تم توفير جميع البيانات الخام والمعالجة الناتجة عن هذه الدراسة مع هذا المقال كملفات تكميلية، وستكون متاحة للعموم دون قيود عند النشر. تحتوي البيانات التكميلية 1 على البيانات الرقمية المصدر التي استندت إليها الأشكال 4-9 والتحليلات الإحصائية المقابلة لها. وتحتوي البيانات التكميلية 2 على الصور الأصلية غير المقصوصة من لطخة ويسترن (western blot) ومقايسة الاستقرار الحراري للخلايا (CETSA). بينما تحتوي البيانات التكميلية 3 على صور المجهر الأصلية ذات الدقة الكاملة المستخدمة في التحليل الكمي. وتتضمن البيانات التكميلية 4 ملفات FCS الخام الخاصة بقياس التدفق الخلوي، وملفات التحكم، ومعلومات التعويض (compensation)، وسجلات تحديد البوابات (gating)، ومساحة عمل FlowJo. أما البيانات التكميلية 5 فتحتوي على نصوص R البرمجية الكاملة المستخدمة في تحليلات علم الصيدلة الشبكي والتحليلات الترانسكريبتومية، بما في ذلك المعالجة المسبقة للبيانات، وتحليل التعبير التفاضلي، والتصور البياني، وتكامل الأهداف، وتحليل الإثراء.
البيانات التكميلية 1. البيانات الرقمية المصدرية والتحليلات الإحصائية. دفتر عمل Excel يحتوي على البيانات الرقمية المصدرية والتحليلات الإحصائية المقابلة لها والتي تستند إليها الأشكال 4–9، وهي منظمة حسب الشكل في أوراق عمل منفصلة. يتضمن دفتر العمل البيانات الكمية المستخدمة لإنشاء الرسوم البيانية والمقارنات الإحصائية.يرجى النقر هنا لتنزيل هذا الملف.
البيانات التكميلية 2. صور لطخة ويسترن وCETSA الأصلية غير المقصوصة. ملف PDF يحتوي على الصور الأصلية غير المقصوصة لجميع تجارب لطخة ويسترن وCETSA المذكورة في المخطوطة، والمنظمة حسب الشكل واللوحة لتوثيق البيانات المصدرية المستخدمة في إعداد الصور والقياس الكمي.يرجى النقر هنا لتنزيل هذا الملف.
البيانات التكميلية 3. صور مجهرية أصلية بدقة كاملة. ملف PDF يحتوي على الصور المجهرية الأصلية بدقة كاملة والمستخدمة في العرض النوعي والتحليلات الكمية، بما في ذلك صور تمثيلية مقابلة للأشكال الموضحة في المخطوطة.يرجى النقر هنا لتنزيل هذا الملف.
البيانات التكميلية 4. بيانات قياس التدفق الخلوي الخام. ملفات FCS الخام، وملفات الضبط، ومعلومات التعويض، وسجلات تحديد البوابات (gating)، ومساحة عمل FlowJo المستخدمة في تحليلات قياس التدفق الخلوي. تتوفر مجموعة البيانات الكاملة عبر Microsoft OneDrive: https://1drv.ms/f/c/8d1d81159583ae0f/IgA367Hi90R5CfjDR5uwoGARiUYsefUFv0_OKSUWT5jGY?e=caEpxo. كما تم توفير ملخص بصيغة PDF لتحليلات قياس التدفق الخلوي كنسخة احتياطية.يرجى النقر هنا لتنزيل هذا الملف.
البيانات التكميلية 5. نصوص R البرمجية لتحليلات الصيدلة الشبكية والنسخية. ملفان من نصوص R البرمجية يحتويان على سير العمل الحسابي الكامل المستخدم في تحليلات الصيدلة الشبكية والنسخية. تتضمن هذه النصوص تحميل الحزم وتثبيتها، والمعالجة المسبقة للبيانات، وتحليل التعبير التفاضلي، ودمج الأهداف، وتحليلات الإثراء الوظيفي، وتصور البيانات، وتوليد النتائج التحليلية المذكورة.يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
لا يتم تحفيز تكوين الخلايا الرغوية في البلاعم من خلال الامتصاص المفرط للبروتينات الدهنية المعدلة فحسب، بل وأيضاً عن طريق ضعف تصدير الكوليسترول والتنشيط الالتهابي المستمر. وتربط الدراسة الحالية بين هذه العمليات من خلال تحديد إشارات AMPK كآلية محتملة يرتبط من خلالها PF بتغيرات متزامنة في التعامل مع الدهون، والاستجابات الالتهابية، والإجهاد الخلوي، والتي تم تخفيف العديد منها عن طريق تثبيط أو إسكات AMPK. وتشير التأثيرات المتوافقة بشكل واسع لـ PF وHQT إلى أن PF يمثل مكوناً ذا صلة بيولوجياً في التركيبة. ومع ذلك، ونظراً لأن HQT يحتوي على مركبات نشطة متعددة قد تعمل بشكل تراكمي أو تآزري، فإن هذه النتائج تدعم اعتبار PF مكوناً ممثلاً بدلاً من إثبات كونه المادة النشطة الرئيسية في HQT.
يعمل AMPK كنقطة تفتيش أيضية يمكنها كبح التنشيط الالتهابي للخلايا البلعمية. وقد أظهرت الدراسات السابقة أن تنشيط AMPK يحد من تحلل IκB، ويقلل من إنتاج الوسائط الالتهابية، ويعزز نمطاً ظاهرياً أقل التهاباً للخلايا البلعمية. كما أشير إلى أن تنشيط AMPK يثبط امتصاص ox-LDL من خلال تنظيم مسار PP2A/NF-κB/LOX-126,27. وتوسع النتائج الدوائية والجينية الحالية هذه الملاحظات من خلال إظهار أن AMPK كان مطلوباً لعدة تأثيرات مرتبطة بـ PF على تصدير الكوليسترول والإشارات الالتهابية. وبالتالي، قد لا يتوسط AMPK مجرد استجابة معزولة لـ PF، بل قد يدمج إجراءاته الأيضية والمعدلة للمناعة في الخلايا البلعمية. وتوفر العلاقة بين AMPK و LXRα و ABCA1 تفسيراً معقولاً للتحسن الملحوظ في تدفق الكوليسترول للخارج. ويُعد LXRα منظماً نسخياً مركزياً لـ ABCA1، ويعمل تنشيط مسار LXRα–ABCA1 على تعزيز إزالة الكوليسترول الزائد من الخلايا البلعمية28. وعلاوة على ذلك، أظهرت الدراسات على الخلايا البلعمية البشرية أن AMPK يمكن أن ينظم LXRα وناقلات الكوليسترول التابعة له، بينما يعتمد تدفق الكوليسترول المحفز بـ LXR بقوة على ABCA129,30. وفي الدراسة الحالية، أدى إسكات AMPK إلى إضعاف تأثيرات PF على وفرة LXRα النووية، وتعبير ABCA1، وتدفق الكوليسترول بوساطة ApoA-I و HDL. وتتفق هذه الملاحظات مع نموذج يحدث فيه التنظيم المرتبط بـ LXRα/ABCA1 في مرحلة لاحقة لـ AMPK. ومع ذلك، نظراً لعدم إسكات ABCA1 بشكل مباشر، فإن البيانات تدعم — ولكن لا تثبت تماماً — تسلسلاً سببياً من AMPK–LXRα–ABCA1.
تشير النتائج أيضاً إلى وجود تنظيم متبادل بين التوازن الداخلي للكوليسترول وإشارات الالتهاب؛ حيث يمكن للالتهاب أن يثبط تعبير ABCA1 وتدفق الكوليسترول إلى الخارج، مما يسهل احتجاز الدهون في الخلايا البلعمية. وعلى العكس من ذلك، فقد ثبت أن تثبيط NF-κB يؤدي إلى استعادة تعبير ABCA1 وتصدير الكوليسترول في الخلايا البلعمية الالتهابية31. وتدعم التأثيرات المماثلة التي أحدثها PF و BAY 11-7082 في الدراسة الحالية هذا التداخل: فقد ترافق تثبيط إشارات NF-κB مع زيادة تعبير ABCA1، وتعزيز تدفق الكوليسترول إلى الخارج، وتقليل تراكم الدهون. وقد أدى إسكات AMPK إلى إضعاف كل من التأثيرات الأيضية والالتهابية لـ PF، مما يشير إلى أن AMPK قد ينسق هاتين العمليتين المترابطتين بدلاً من تنظيمهما بشكل مستقل. وقد أثبتت أعمال سابقة أن PF يمكن أن يثبط تنشيط الخلايا البلعمية المحفزة للالتهابات عن طريق تثبيط إشارات NF-κB. كما أفادت تقارير بأن العلاجات التي تحتوي على PF تعزز تصدير الكوليسترول المرتبط بـ ABCA1/ABCG1 وتقلل من تكوين الخلايا الرغوية32,33. وتقدم الدراسة الحالية سياقاً ميكانيكياً إضافياً من خلال ربط هذه الخصائص المنظمة للدهون والمضادة للالتهابات الموصوفة سابقاً بـ AMPK. علاوة على ذلك، فإن المقارنة مع تحضير HQT الكامل تميز العمل الحالي عن الدراسات التي فحصت PF بمعزل عن غيره، وتشير إلى أن PF و HQT أنتجا تأثيرات متداخلة جزئياً في اختبارات الخلايا البلعمية المختارة.
قد تساهم الآليات المرتبطة بـ AMPK في تأثيرات PF على الإجهاد التأكسدي وسلامة الميتوكوندريا. إذ يضع تحميل الدهون الناجم عن Ox-LDL إجهادًا طاقيًا وتأكسديًا كبيرًا على البلاعم، مما قد يعزز من زوال استقطاب الميتوكوندريا والموت الخلوي المبرمج. وبالتالي، فإن الاستعادة المتزامنة لمستويات ATP، وجهد غشاء الميتوكوندريا، والقدرة المضادة للأكسدة التي لوحظت بعد العلاج بـ PF تتوافق مع حماية أيضية منسقة بدلاً من كونها عدة تأثيرات غير مرتبطة. وقد وجدت دراسة سابقة على البلاعم بشكل مماثل أن PF قلل من تراكم ROS، وحافظ على جهد غشاء الميتوكوندريا، وغيّر النمط الظاهري الالتهابي من خلال تنظيم مراقبة جودة الميتوكوندريا34. تشير هذه النتائج إلى أن الحفاظ على وظيفة الميتوكوندريا قد يساهم في الإجراءات المضادة للالتهابات والمضادة للموت الخلوي المبرمج لـ PF، رغم أن المؤثرات النهائية المحددة لـ AMPK لا تزال بحاجة إلى تحديد. وتوفر نتائج CETSA خطًا إضافيًا من الأدلة التي تربط PF بـ AMPK. لقد تم تطوير CETSA لتقييم الارتباط بين الدواء والهدف داخل الخلايا من خلال اكتشاف التغيرات المرتبطة بالرابط في الاستقرار الحراري للبروتين35. وتتوافق نتائج CETSA القائمة على المحلل الخلوي مع استقرار AMPK أو معقد بروتيني يحتوي على AMPK مرتبط بـ PF في المحللات الخلوية. ومع ذلك، لا يمكن للاستقرار الحراري وحده التمييز بين الارتباط المباشر للرابط وبين الاستقرار غير المباشر الناتج عن تغير الفسفرة، أو التفاعلات البروتينية، أو السياق الخلوي. وسيتطلب تأكيد الارتباط المباشر بين PF وAMPK استخدام بروتينات منقاة أو طرق بيوفيزيائية أخرى.
كما قلل PF من نسبة الخلايا الموجبة لـ CD86 وزاد من نسبة الخلايا الموجبة لـ CD206، وقد تم تخفيف هذه التغيرات عن طريق إسكات AMPK. وتتوافق هذه النتائج مع الأدلة السابقة التي تشير إلى أن PF يمكن أن يغير النمط الظاهري الالتهابي للبلاعم32,34. ومع ذلك، فإن تنشيط البلاعم يحدث ضمن طيف متعدد الأبعاد بدلاً من حالتين ثابتتين هما M1 وM236. ولذلك، يجب تفسير CD86 وCD206 على أنهما علامات نمط ظاهري مرتبطة بالبرامج الالتهابية والترميمية، على التوالي، بدلاً من اعتبارهما دليلاً قاطعاً على تحول كامل من M1 إلى M2. وستكون هناك حاجة إلى علامات نسخية وإفرازية ووظيفية إضافية لتوصيف النمط الظاهري للبلاعم بشكل أكثر شمولاً. وينبغي الإقرار بعدة قيود؛ أولاً، اقتصرت التجارب على خلايا RAW264.7، وتتطلب النتائج التحقق من صحتها في البلاعم الأولية أو البشرية وفي نماذج تصلب الشرايين (AS) داخل الجسم الحي. ثانياً، على الرغم من أن تركيز PF المختار لم يكن ساماً للخلايا وزاد من فسفرة AMPK، إلا أنه لم يتم إنشاء علاقة استجابة للتركيز كاملة للنتائج الوظيفية الرئيسية. ثالثاً، لم يتم إجراء تجارب فقدان الوظيفة والإنقاذ الخاصة بـ ABCA1، وبالتالي يجب اعتبار مسار AMPK–LXRα–ABCA1 المقترح كنموذج آلي مدعوم بدلاً من كونه تسلسلاً خطياً ثابتاً بالكامل. رابعاً، تمت مقارنة PF وHQT باستخدام وحدات تركيز مختلفة، ولم يتم تقييم محتوى PF والاتساق الكيميائي النباتي لمستحضر HQT كمياً. وأخيراً، تشير نتائج CETSA إلى احتمال ارتباط الهدف داخل الخلايا ولكنها لا تثبت بشكل مستقل الارتباط الجزيئي المباشر.
وفي الختام، تشير النتائج الحالية إلى أن PF يخفف من خلل وظائف الخلايا البلعمية الناجم عن ox-LDL من خلال تنسيق تصدير الكوليسترول، وإشارات الالتهاب، وأيض الطاقة، والتوازن الميتوكوندري. وقد أدى التثبيط الدوائي وإسكات AMPK بوساطة siRNA إلى إضعاف العديد من التأثيرات الوقائية التي يتوسطها PF، ورافق ذلك تغيرات في وفرة LXRα النووية، وتعبير ABCA1، وتدفق الكوليسترول، وإشارات NF-κB. كما أظهر PF تأثيرات وقائية للخلايا البلعمية تداخلت مع العديد من التأثيرات الملاحظة بعد العلاج بـ HQT في ظل الظروف التي تم اختبارها. ولا يزال إسهام PF في النشاط الإجمالي لـ HQT غير محدد.
الإفصاحات
تضارب المصالح:
يصرح المؤلفون بأنه لا توجد لديهم أي تضاربات في المصالح.
شكر وتقدير
لا شيء.
إسهامات المؤلفين:
يونجي زينغ: التصور، منهجية البحث، التحقيق، التحليل الرسمي، إدارة البيانات، التصور البصري، والكتابة – المسودة الأولى.
هوايينغ وانغ: المنهجية، التحقيق، التحليل الرسمي، التحقق، تنقيح البيانات، التصور البصري، والكتابة – المسودة الأولى.
دونغ ليو: المنهجية، التحقيق، والتحقق.
يونلو جيانغ: التحقيق، إدارة البيانات، والتحليل الرسمي.
بنغتشنغ رِن: التحقيق، والتحليل الرسمي، والتصور البصري.
وينشين سونغ: الموارد، التحقق، والكتابة – مراجعة &؛ تحرير.
غووبينغ هوانغ: التصور، المنهجية، الإشراف، إدارة المشروع، الحصول على التمويل، والكتابة – المراجعة &؛ التحرير.
شياوجياو هي: التصور، الموارد، الإشراف، إدارة المشروع، الحصول على التمويل، والكتابة – المراجعة &؛ التحرير.
ساهم يونجي زينغ و هوآينغ وانغ بشكل متساوٍ في هذا العمل ويشاركان في المؤلفية الأولى. غووبينغ هوانغ و شياوجياو هي مؤلفان مشاركان مسؤولان. استعرض جميع المؤلفين النسخة النهائية من المخطوطة ووافقوا عليها.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| نظام التصوير بالتلألؤ الكيميائي | Thermo Fisher Scientific | iBright Imaging System | |
| جهاز قياس التدفق الخلوي | BD Biosciences | FACSCanto II | |
| مجهر فلوري مقلوب | Olympus | IX73 | |
| قارئ الأطباق الدقيقة | PerkinElmer | VICTOR X3 | |
| نظام تفاعل البوليميراز المتسلسل في الوقت الحقيقي | Bio-Rad | CFX Opus 96 | |
| مقياس الطيف الضوئي | Thermo Fisher Scientific | NanoDrop 8000 |
المراجع
- Zysman M et al. Risk of cardiovascular events according to the severity of an exacerbation of chronic obstructive pulmonary disease. Eur J Prev Cardiol. 2025;32(15):1436-1444. doi:10.1093/eurjpc/zwaf086.
- Zvintzou E et al. Context-dependent effects of apolipoprotein A2 on lipid metabolism and atherogenesis. FASEB J. 2026;40(12):e72032. doi:10.1096/fj.202600765R.
- Zuriaga MA et al. Colchicine prevents accelerated atherosclerosis in TET2-mutant clonal haematopoiesis. Eur Heart J. 2024;45(43):4601-4615. doi:10.1093/eurheartj/ehae546.
- Zhang Y et al. Effects and mechanisms of Zhizi Chuanxiong herb pair against atherosclerosis: an integration of network pharmacology, molecular docking, and experimental validation. Chin Med. 2024;19(1):8. doi:10.1186/s13020-023-00874-x.
- Zysset D et al. TREM-1 links dyslipidemia to inflammation and lipid deposition in atherosclerosis. Nat Commun. 2016;7:13151. doi:10.1038/ncomms13151.
- Zou Z et al. Recent advances in nanozymes for the treatment of atherosclerosis. Int J Nanomedicine. 2025;20:9447-9472. doi:10.2147/IJN.S540010.
- Zoubdane N et al. High tyrosol and hydroxytyrosol intake reduces arterial inflammation and atherosclerotic lesion microcalcification in healthy older populations. Antioxidants (Basel). 2024;13(1):130. doi:10.3390/antiox13010130.
- Zhong T et al. Adaptation of endothelial cells to shear stress under atheroprone conditions by modulating internalization of vascular endothelial cadherin and vinculin. Ann Transl Med. 2020;8(21):1423. doi:10.21037/atm-20-3426.
- Zhuo S et al. Inflammatory corpuscle AIM2 facilitates macrophage foam cell formation by inhibiting cholesterol efflux protein ABCA1. Sci Rep. 2024;14(1):10782. doi:10.1038/s41598-024-61495-4.
- Zheng H et al. Lp-PLA2 silencing protects against ox-LDL-induced oxidative stress and cell apoptosis via Akt/mTOR signaling pathway in human THP-1 macrophages. Biochem Biophys Res Commun. 2016;477(4):1017-1023. doi:10.1016/j.bbrc.2016.07.022.
- Zhou Y et al. Asperlin inhibits LPS-evoked foam cell formation and prevents atherosclerosis in ApoE(-/-) mice. Mar Drugs. 2017;15(11):358. doi:10.3390/md15110358.
- Zhong Y, Liu C, Feng J, Li JF, Fan ZC. Curcumin affects ox-LDL-induced IL-6, TNF-α, MCP-1 secretion and cholesterol efflux in THP-1 cells by suppressing the TLR4/NF-κB/miR33a signaling pathway. Exp Ther Med. 2020;20(3):1856-1870. doi:10.3892/etm.2020.8915.
- Zhu C et al. TRIM64 promotes ox-LDL-induced foam cell formation, pyroptosis, and inflammation in THP-1-derived macrophages by activating a feedback loop with NF-κB via IκBα ubiquitination. Cell Biol Toxicol. 2023;39(3):607-620. doi:10.1007/s10565-022-09768-4.
- Zhang G et al. OxLDL/β2GPI/anti-β2GPI Ab complex induces inflammatory activation via the TLR4/NF-κB pathway in HUVECs. Mol Med Rep. 2021;23(2):148. doi:10.3892/mmr.2020.11787.
- Zu YX et al. Jiang Gui Fang activated interscapular brown adipose tissue and induced epididymal white adipose tissue browning through the PPARγ/SIRT1-PGC1α pathway. J Ethnopharmacol. 2020;248:112271. doi:10.1016/j.jep.2019.112271.
- Zu X et al. Antidepressant-like effect of Bacopaside I in mice exposed to chronic unpredictable mild stress by modulating the hypothalamic-pituitary-adrenal axis function and activating BDNF signaling pathway. Neurochem Res. 2017;42(11):3233-3244. doi:10.1007/s11064-017-2360-3.
- Zong K et al. Explorating the mechanism of Huangqin Tang against skin lipid accumulation through network pharmacology and experimental validation. J Ethnopharmacol. 2023;313:116581. doi:10.1016/j.jep.2023.116581.
- Zou Y et al. Huangqin Tang ameliorates dextran sodium sulphate-induced colitis by regulating intestinal epithelial cell homeostasis, inflammation and immune response. Sci Rep. 2016;6:39299. doi:10.1038/srep39299.
- Zou Y et al. Huangqin Tang ameliorates TNBS-induced colitis by regulating effector and regulatory CD4(+) T cells. Biomed Res Int. 2015;2015:102021. doi:10.1155/2015/102021.
- Wang D et al. Huangqin tang alleviates colitis-associated colorectal cancer via amino acid homeostasis and PI3K/AKT/mTOR pathway modulation. J Ethnopharmacol. 2024;334:118597. doi:10.1016/j.jep.2024.118597.
- Zhu X, Zhou Y, Cai W, Sun H, Qiu L. Salusin-β mediates high glucose-induced endothelial injury via disruption of AMPK signaling pathway. Biochem Biophys Res Commun. 2017;491(2):515-521. doi:10.1016/j.bbrc.2017.06.126.
- Zhu J, Chen H, Guo J, Zha C, Lu D. Sodium tanshinone IIA sulfonate inhibits vascular endothelial cell pyroptosis via the AMPK signaling pathway in atherosclerosis. J Inflamm Res. 2022;15:6293-6306. doi:10.2147/JIR.S386470.
- Kim J et al. Inhibition of Toll-like receptors alters macrophage cholesterol efflux and foam cell formation. Int J Mol Sci. 2024;25(12):6808. doi:10.3390/ijms25126808.
- Zuo J, Guo S, Qin X. Bisdemethoxycurcumin suppresses the progression of atherosclerosis and VSMC-derived foam cell formation by promoting lipophagy. Naunyn Schmiedebergs Arch Pharmacol. 2023;396(12):3659-3670. doi:10.1007/s00210-023-02558-7.
- Zong P et al. TRPM2 deficiency in mice protects against atherosclerosis by inhibiting TRPM2-CD36 inflammatory axis in macrophages. Nat Cardiovasc Res. 2022;1(4):344-360. doi:10.1038/s44161-022-00027-7.
- Sag D, Carling D, Stout RD, Suttles J. Adenosine 5'-monophosphate-activated protein kinase promotes macrophage polarization to an anti-inflammatory functional phenotype. J Immunol. 2008;181(12):8633-8641. doi:10.4049/jimmunol.181.12.8633.
- Chen B, Li J, Zhu H. AMP-activated protein kinase attenuates oxLDL uptake in macrophages through PP2A/NF-κB/LOX-1 pathway. Vascul Pharmacol. 2016;85:1-10. doi:10.1016/j.vph.2015.08.012.
- Chawla A et al. A PPARγ-LXR-ABCA1 pathway in macrophages is involved in cholesterol efflux and atherogenesis. Mol Cell. 2001;7(1):161-171. doi:10.1016/S1097-2765(01)00164-2.
- Saenz J et al. Grapefruit flavonoid naringenin regulates the expression of LXRα in THP-1 macrophages by modulating AMP-activated protein kinase. Mol Pharm. 2018;15(5):1735-1745. doi:10.1021/acs.molpharmaceut.7b00797.
- Larrede S et al. Stimulation of cholesterol efflux by LXR agonists in cholesterol-loaded human macrophages is ABCA1-dependent but ABCG1-independent. Arterioscler Thromb Vasc Biol. 2009;29(11):1930-1936. doi:10.1161/ATVBAHA.109.194548.
- Zhao GJ et al. Antagonism of betulinic acid on LPS-mediated inhibition of ABCA1 and cholesterol efflux through inhibiting nuclear factor-kappaB signaling pathway and miR-33 expression. PLoS One. 2013;8(9):e74782. doi:10.1371/journal.pone.0074782.
- Zhai T et al. Unique immunomodulatory effect of paeoniflorin on type I and II macrophages activities. J Pharmacol Sci. 2016;130(3):143-150. doi:10.1016/j.jphs.2015.12.007.
- Mei J et al. Tetramethylpyrazine and Paeoniflorin Synergistically Attenuate Cholesterol Efflux in Macrophage Cells via Enhancing ABCA1 and ABCG1 Expression. Evid Based Complement Alternat Med. 2022;2022:4304790. doi:10.1155/2022/4304790.
- Cao Y et al. Paeoniflorin suppresses kidney inflammation by regulating macrophage polarization via KLF4-mediated mitophagy. Phytomedicine. 2023;116:154901. doi:10.1016/j.phymed.2023.154901.
- Martinez Molina D et al. Monitoring drug target engagement in cells and tissues using the cellular thermal shift assay. Science. 2013;341(6141):84-87. doi:10.1126/science.1233606.
- Xue J et al. Transcriptome-based network analysis reveals a spectrum model of human macrophage activation. Immunity. 2014;40(2):274-288. doi:10.1016/j.immuni.2014.01.006.