تؤدي الإصابة بالنيماتودا الكلوية إلى تقليل إنتاجية القطن وجودة الألياف بشكل كبير. يعمل اللجنين على تقوية جدران الخلايا النباتية ويساهم في الدفاعات الهيكلية ضد الآفات، إلا أن دوره في مقاومة النيماتودا الكلوية في القطن لم يتم فحصه بعد. تصف هذه الدراسة سير عمل كيميائي نسيجي لتصور ترسب اللجنين في جذور أنماط جينية من القطن (*Gossypium arboreum*) مقاومة وحساسة للنيماتودا الكلوية باستخدام صبغة الفلوروغلوسينول.
مقالة بحثية
التحليل النسيجي الكيميائي للفروق في اللجنين بين أصناف القطن المقاومة والحساسة للنيماتودا الكلوية
في هذه المقالة
ملخص
الملخص
تُعد النيماتودا الكلوية (Rotylenchulus reniformis) عائقاً رئيسياً أمام إنتاج القطن، لا سيما في جنوب الولايات المتحدة. وتعتبر النيماتودا الكلوية ثاني أهم آفة من بين أكثر من 400 نوع من أنواع النيماتودا، حيث تشكل هذه النيماتودا تهديداً للأمن الغذائي العالمي. وقد أدت المخاوف المتزايدة بشأن البيئة وصحة الإنسان، بالإضافة إلى تكلفة مبيدات النيماتودا، إلى تكثيف الاهتمام بالأصول الوراثية المقاومة للقطن. ويعد الجدار الخلوي للنبات، وخاصة اللجنين، بوليمراً حيوياً حاسماً يشارك في المقاومة ضد الإجهاد الحيوي. وبما أن النيماتودا تصيب أنسجة الجذور، فإن مكونات الجدار الخلوي مثل اللجنين قد تساهم في الدفاع؛ ومع ذلك، فإن الحواجز التي يتوسطها اللجنين في جذور القطن ليست موصفة بشكل جيد. استخدمت هذه الدراسة بروتوكول صبغ نسيجي كيميائي معياري باستخدام الفلوروغلوسينول-HCl لتصور الاختلافات في ترسب اللجنين في أنماط وراثية من القطن المقاوم (A2-514, A2-995) والحساس (Gossypium arboreum) للنيماتودا الكلوية في مرحلة الورقة الحقيقية تحت ظروف غير مصابة. ترتبط هذه الصبغة تحديداً بهيدروكسي سيناميل ألدهيد مثل كونيفيريل ألدهيد وسينابيل ألدهيد الموجود في اللجنين بوجود الحمض، وتنتج لوناً أرجوانياً وردياً لتصوير اللجنين. وقد لوحظت أنماط صبغ متميزة للجنين بين الأنماط الوراثية المقاومة والحساسة، مما يدعم وجود دور محتمل للدفاعات الهيكلية المرتبطة باللجنين.
المقدمة
يُزرع القطن في جميع أنحاء العالم من أجل أليافه، وهو عرضة بشدة للآفات المنقولة عن طريق التربة، وخاصة النيماتودا، التي يمكن أن تسبب خسائر فادحة في المحصول. ومن بين هذه الآفات، تعد النيماتودا الكلوية (Rotylenchulus reniformis) مسبباً مرضياً رئيسياً يؤثر على القطن ومحاصيل أخرى على مستوى العالم، مع تأثيرات ملحوظة في جنوب الولايات المتحدة، حيث يمكن أن تؤدي الإصابات إلى خفض الإنتاجية بنسبة تزيد عن 50%1. يقوم هذا الكائن المجهري الذي يعيش في التربة بالتطفل على جذور القطن2، مما يضعف حيوية النبات والكتلة الحيوية وإنتاجية الألياف من خلال تعطيل امتصاص الماء والمواد المغذية وإنشاء مواقع للتغذية (الشكل 1). وتؤدي الإصابة بالنيماتودا الكلوية إلى تغيير نمو نبات القطن عن طريق تأخير وقت التزهير، وتقليل حجم وعدد اللوز، وإضعاف جودة الزغب3. وقد تم الإبلاغ عن خسائر فادحة في ميسيسيبي وألاباما ولويزيانا4. وتُستخدم مبيدات النيماتودا عادةً لإدارة إصابات النيماتودا، ولكن تكلفتها العالية وتأثيرها السلبي على البيئة وصحة الإنسان استوجبا الحاجة إلى بدائل5,6. ويمثل تطوير أصول وراثية مقاومة نهجاً واعداً للتخفيف من أضرار النيماتودا الكلوية4. وبما أن النيماتودا تتغذى داخل أنسجة الجذور، فمن المفترض أن تعمل الدفاعات القائمة على جدار الخلية، وخاصة التخشب (lignification)، على تقييد الغزو، وتثبيط الإنزيمات المحللة لجدار الخلية المشتقة من الممرض، والحد من إنشاء وتوسيع مواقع تغذية النيماتودا7,8,9. وقد ارتبط تعزيز التخشب بانخفاض القابلية للإصابة بالممرضات عبر أنواع نباتية مختلفة10,11,12,13,14. وقد ربطت الأبحاث السابقة في القطن بين تعبير جينات اللجنين واللاكيز والمقاومة ضد Verticillium dahliae15، كما كشفت الدراسات على الأصناف المقاومة والحساسة لـ Fusarium عن مستويات أعلى من اللجنين في الأصناف المقاومة16. وتؤكد ملاحظات مماثلة في Arabidopsis والأرز، حيث أدى تثبيط جينات التخليق الحيوي للجنين إلى زيادة القابلية للإصابة، على أهمية التخشب في دفاع النبات.
اللجنين عبارة عن بوليمر حيوي فينولي معقد يوجد في الجدران الخلوية الثانوية للنباتات الوعائية، حيث يمنحها الصلابة الهيكلية، والقوة الميكانيكية، وكره الماء17. يتم تخليق اللجنين عبر مساري الشيكيمات والفينيل بروبانويد، وهو ثاني أكثر البوليمرات الحيوية البرية وفرة بعد السليلوز، حيث يمثل حوالي 30% من الكربون العضوي على الأرض18,19. ومن خلال تعزيز شبكة السليلوز-هيميسليلوز، يعمل اللجنين على تقوية الأنسجة الحاملة للأحمال ويدعم النمو العام للنبات. يبرز اللجنين بشكل خاص في الأنسجة عالية التخصص مثل الخشب، والنسيج السكلرنشيمي، وألياف اللحاء، والفلين، مما يشكل حاجزاً طارداً للماء ضرورياً للنقل الفعال للمياه والمعادن. وبالإضافة إلى الوظائف الهيكلية، يعمل اللجنين كحاجز دفاع كيميائي حيوي وفيزيائي، مما يحد من دخول المسببات المرضية ويقلل من الأضرار الناجمة عن الإجهادات الحيوية وغير الحيوية20,21,22. وتعد عملية التخشب عملية ديناميكية مركزية في المقاومة ضد مجموعة واسعة من المسببات المرضية، بما في ذلك الكائنات الميتة التغذية، والحيوية التغذية، وشبه الحيوية التغذية. ويختلف تخليقه الحيوي من أحاديات اللجنين الأساسية (كحول السينابيل، والكونيفيريل، والـ p-كوماريل) حسب النوع، ونوع النسيج، والمرحلة النمائية، مما يؤثر على درجة المقاومة. وغالباً ما يؤدي غزو المسببات المرضية أو الإجهاد غير الحيوي إلى تحفيز ترسيب اللجنين بشكل موضعي، مما يعزز الدفاعات النباتية بشكل أكبر23,24.
يعد توضيح دور اللجنين في مقاومة النيماتودا الكلوية أمراً بالغ الأهمية لتطوير استراتيجيات إدارة القطن. ويوفر التوصيف البصري والكيميائي الحيوي لتوزيع اللجنين رؤية متعمقة حول الديناميكيات المكانية والزمانية لتعديلات الجدار الخلوي التي تدعم استجابات الدفاع المبكرة. تستخدم هذه الدراسة صبغ الفلوروغلوسينول النسيجي لتحليل أنماط ترسيب اللجنين الموجودة طبيعياً في التركيبات الوراثية للقطن المقاومة والقابلة للإصابة بالنيماتودا الكلوية، مما يوفر إطاراً أولياً عملياً لتقييم سمات المقاومة المرتبطة بالجدار الخلوي وإثراء برامج التربية التي تهدف إلى تحسين قدرة المحاصيل على الصمود.
البروتوكول
أُجريت التجارب في دفيئة زراعية باستخدام المواد النباتية الموضحة أدناه. تتوفر كافة الكيماويات والمعدات والكواشف المستخدمة في هذه الدراسة بالتفصيل في جدول المواد.
المادة النباتية
تم الحصول على بذور لكل من الأصول الوراثية القابلة للإصابة (A2‑20, PI 129742; A2‑40, PI 183202) والمقاومة (A2‑514, PI 616008; A2‑995, PI 629323). بالإضافة إلى ذلك، تم إدراج الصنف Deltapine 16 القابل للإصابة في هذه الدراسة. وُضعت البذور في ماء معقم ونُقعت لمدة 24 h في درجة حرارة الغرفة. وبعد النقع، شُطفت البذور جيداً بماء معقم جديد لإزالة الملوثات المتبقية. ثم نُقلت البذور المشطوفة إلى أطباق بتري معقمة مبطنة بمناشف ورقية معقمة ومبللة مسبقاً، وحُضنت لمدة يومين في درجة حرارة الغرفة لتسهيل عملية الإنبات (الشكل 2).
الزراعة في الدفيئة
مُلئت أوانٍ بلاستيكية بمزيج تربة للزراعة يتحكم في الرطوبة ومبلل مسبقاً. تم ترطيب التربة مسبقاً لمدة يومين قبل عملية النقل. بعد ذلك، نُقلت الشتلات النابتة بعناية إلى التربة المبللة مسبقاً، وحُفظت تحت ظروف دفيئة محكومة في دورات نهارية/ليلية تبلغ 28 °C/25 °C حتى مرحلة الأوراق الحقيقية (الشكل 2). كما تم زرع ثلاث مكررات بيولوجية لكل نمط جيني.
جمع العينات
تمت إزالة النباتات في مرحلة الأوراق الحقيقية برفق من التربة عن طريق تفكيك وسط التربة المحيط لتقليل تلف الجذور. غُسلت الجذور 2–3 مرات بالماء لإزالة جزيئات التربة العالقة. ثم جُمعت أنسجة الجذور والمجموع الخضري من كل نمط جيني لغرض التقطيع (الشكل 3).
تحضير محلول صبغ الفلوروغلوسينول
تم تحضير محلول فلوروغلوسينول بتركيز 3% عن طريق إذابة 0.45 g من الفلوروغلوسينول في خليط يتكون من جزأين من الإيثانول بتركيز 100% (10 mL) وجزء واحد من حمض HCl المركز (5 mL) داخل خزانة الغازات. وقد تم تحضير محلول الصبغ باتباع طريقة موصوفة مسبقاً16.
تحضير المقاطع وإجراءات التلوين للتحليل الهيستوكيميائي لللجنين
تم تقطيع أنسجة الجذور والمجموع الخضري باستخدام شفرة حلاقة معقمة للحصول على مقاطع عرضية رقيقة (الشكل 3). نُقلت المقاطع الطازجة إلى شرائح مجهرية وغُطيت بـ 20 µL من محلول صبغة الفلوروغلوسينول بتركيز 3% لمدة 1 min. بعد ذلك، شُطفت المقاطع بماء معقم، وثُبتت تحت أغطية الشرائح، ثم صُوِّرت (الشكل 4، الشكل 5، الشكل 6). استُخدم الإجراء نفسه لأنسجة الساق (الشكل التكميلي 1).
التصوير المجهري
أُجري التصوير باستخدام مجهر رقمي؛ حيث وُضعت الشرائح الزجاجية المُحضرة والتي تحتوي على عينات أنسجة مصبوغة على منصة المجهر للتصوير. وبعد تشغيل برنامج التصوير الخاص بالمجهر، تم اختيار قوة التكبير المطلوبة 100x و 200x و 300x في وضع المجال المضيء (bright-field mode). كما أُجريت تعديلات الضبط الخشن والدقيق للتركيز لرؤية أنماط صبغ اللجنين بوضوح داخل مقاطع الأنسجة. سُجلت الصور وحُفظت مع أرقام تعريف العينات الخاصة بها. بعد ذلك، أُجري تحليل مقارن عبر فحص صور كل من التركيبات الوراثية المقاومة والحساسة لتقييم الاختلافات في صبغ اللجنين. وقورنت صور التركيبات الوراثية المقاومة والحساسة باستخدام برنامج ImageJ لتحديد الاختلافات في النسبة المئوية للمساحة المصبوغة باستخدام عتبات موحدة. صُدّرت النتائج كملفات CSV بعد معالجة جميع المكررات الثلاثة، ثم أُعدّت الرسوم البيانية لمقارنة التركيبات الوراثية المقاومة والحساسة.
النتائج
التحليل الهيستوكيميائي للأنماط الجينية للقطن المقاومة والحساسة
كشف الفحص الكيميائي النسيجي لمقاطع عرضية من الجذر والساق في مرحلة الورقة الحقيقية عن وجود اختلافات مرئية بين الأنماط الوراثية المقاومة والحساسة، كما هو موضح في الشكل 4، والشكل 5، والشكل التكميلي 1 (مقاطع عرضية للساق). وفرت التكبيرات الأعلى (100x–300x) رؤى مفصلة لهذه الاختلافات (الشكل 4A–C والشكل 5A–C للأنماط الوراثية المقاومة، والشكل 4D–F والشكل 5D–F للأنماط الوراثية الحساسة). اختلفت أنماط صبغ اللجنين حسب أنواع الأنسجة: أظهرت الأنماط الوراثية المقاومة أنماط صبغ لجنين أقل أو مماثلة في السيقان، بينما أظهرت الأنماط الوراثية الحساسة زيادة نسبية في تغلظ السيقان باللجنين بصرياً (الشكل التكميلي 1A–D).
التحليل الكمي للصور الخاصة بتصبيغ اللجنين
أظهر الصنف Deltapine 16، وهو صنف حساس شمله البحث، صبغاً أقل لللجنين (Figure 6A–C) بقيم للنسبة المئوية للمنطقة المصبوغة بلغت 12 و17.8 و16.3 (Figure 6D). وسجل النمط الجيني الحساس A2-40 قيم نسبة مئوية للمنطقة المصبوغة بلغت 25.2 و19.9 و28.75، بينما أظهر النمط الجيني المقاوم A2-995 قيم نسبة مئوية للمنطقة المصبوغة بلغت 54.95 و58.71 و69.85 (Figure 7). ومع ذلك، سجل A2-20 قيم نسبة مئوية للمنطقة المصبوغة بلغت 16.6 و21.3 و20.4، بينما أظهر A2-514 قيم نسبة مئوية للمنطقة المصبوغة بلغت 49.8 و34.1 و43.38 (Figure 8). وقد أسفرت المقارنة عن قيمة p-value بلغت 0.06. ونظراً لأن هذه القيم استُخرجت باستخدام عتبات مختلفة، فقد أُجري تحليل ImageJ بعتبة موحدة باستخدام عتبات متطابقة للتدرج اللوني والتشبع والسطوع لضمان إمكانية تكرار النتائج عبر العينات المكررة. وأظهر النمط الجيني المقاوم (A2-514) صبغاً أكبر نسبياً مقارنة بالنمط الجيني الحساس (A2-20). وقد حُسبت النسبة المئوية للمنطقة المصبوغة كنسبة عدد البكسلات الموجبة للجنين إلى إجمالي بكسلات الأنسجة داخل المقطع. وتظهر المقارنة الكمية ذات العتبة الموحدة للنمط الجيني الحساس A2-20 والنمط الجيني المقاوم A2-514 في Figure 9. وبشكل عام، يوضح تحليل العتبة الموحدة وجود اختلافات في عملية اللجنين خاصة بكل نمط جيني بين هذه الأنماط الجينية.
توافر البيانات:
تمت إضافة البيانات الخام كـ ملف تكميلي.
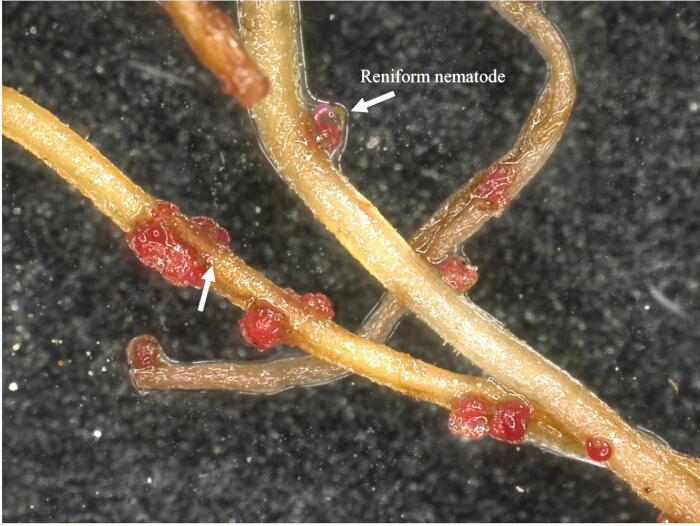
الشكل 1: منظر مجهري لنيماتودا كلوية الشكل تتغذى على جذور القطن. تظهر النيماتودا كلوية الشكل وهي تتغذى على جذور القطن بتكبير 50x بعد الصبغ بملون طعام أحمر. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
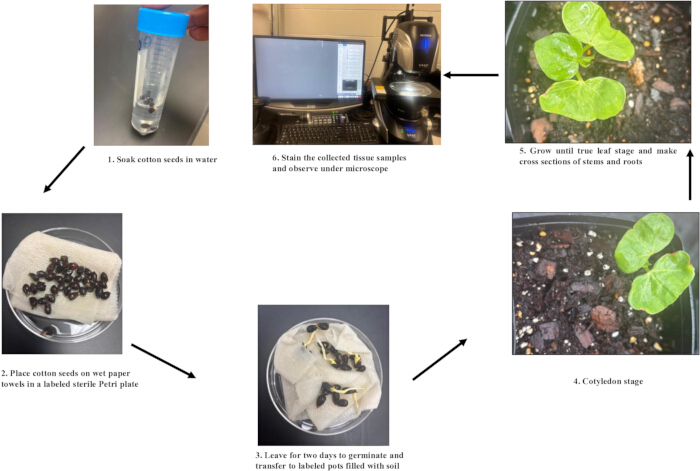
الشكل 2: تحضير المادة النباتية للتحليل الهستوكيميائي للـ lignin. يتكون سير العمل من الخطوات التالية: (1) نقع بذور القطن في الماء؛ (2) وضع البذور على مناشف ورقية مبللة في طبق بتري معقم ومصنف؛ (3) ترك البذور لتنبت لمدة يومين ثم نقل الشتلات إلى أصص مصنفة تحتوي على التربة؛ (4) تنمية الشتلات حتى مرحلة الفلقات؛ (5) الاستمرار في تنمية النباتات حتى مرحلة الأوراق الحقيقية وتحضير مقاطع عرضية من السيقان والجذور؛ و(6) صبغ مقاطع الأنسجة المجمعة وفحصها تحت المجهر. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
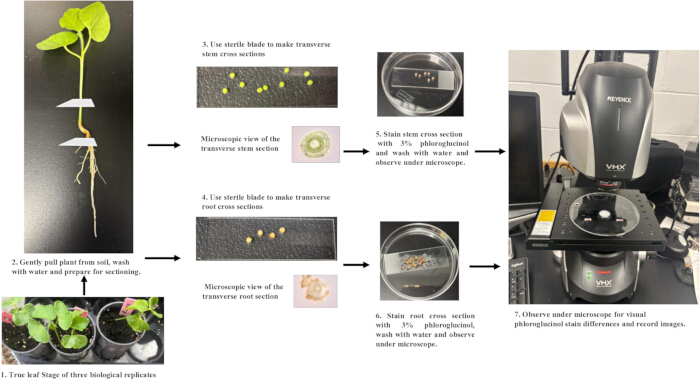
الشكل 3: جمع وصبغ مقاطع من جذور وسيقان القطن باستخدام phloroglucinol-HCl. يتكون سير العمل من الخطوات التالية: (1) تنمية ثلاث مكررات بيولوجية حتى مرحلة الورقة الحقيقية؛ (2) إزالة النباتات برفق من التربة، وغسلها بالماء، وتجهيزها لعملية التقطيع؛ (3) استخدام شفرة معقمة لتحضير مقاطع عرضية للساق؛ (4) استخدام شفرة معقمة لتحضير مقاطع عرضية للجذر؛ (5) صبغ مقاطع الساق بـ 3% phloroglucinol-HCl، وشطفها بالماء، وفحصها تحت المجهر؛ (6) صبغ مقاطع الجذر بـ 3% phloroglucinol-HCl، وشطفها بالماء، وفحصها تحت المجهر؛ و(7) فحص المقاطع المصبوغة تحت المجهر لتصور الاختلافات في صبغ phloroglucinol وتسجيل الصور. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
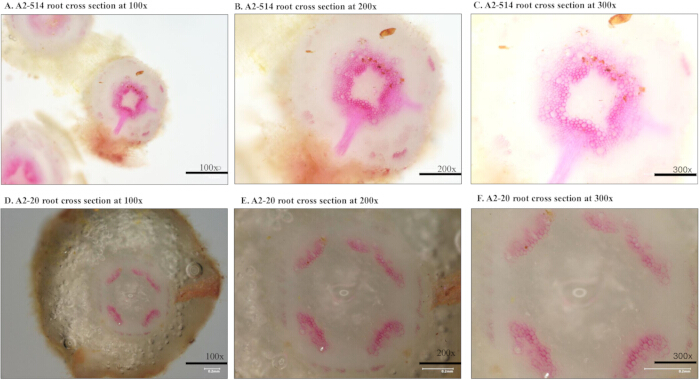
الشكل 4: صبغ اللجنين في المقاطع العرضية لجذور التراكيب الوراثية للقطن A2-514 و A2-20. مقاطع عرضية لجذور التركيب الوراثي المقاوم A2-514 مصبوغة باللجنين عند تكبير (A) 100x، و(B) 200x، و(C) 300x. مقاطع عرضية لجذور التركيب الوراثي القابل للإصابة A2–20 مصبوغة باللجنين عند تكبير (D) 100x، و(E) 200x، و(F) 300x. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
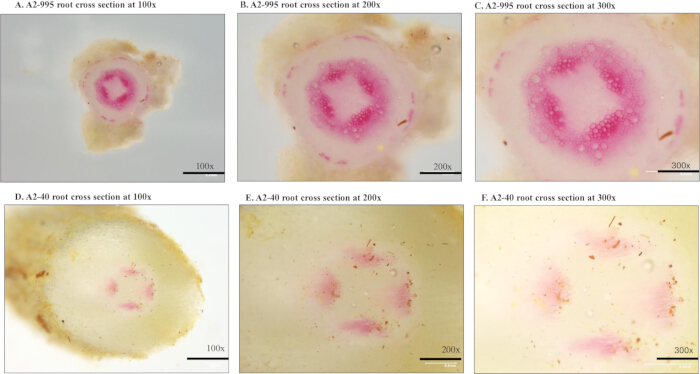
الشكل 5: صبغ اللجنين في المقاطع العرضية للجذور في التركيبات الجينية للقطن A2-995 و A2-40. مقاطع عرضية للجذور مصبوغة باللجنين للتركيبة الجينية المقاومة A2-995 بتكبير (A) 100x، و(B) 200x، و(C) 300x. مقاطع عرضية للجذور مصبوغة باللجنين للتركيبة الجينية القابلة للإصابة A2-40 بتكبير (D) 100x، و(E) 200x، و(F) 300x. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
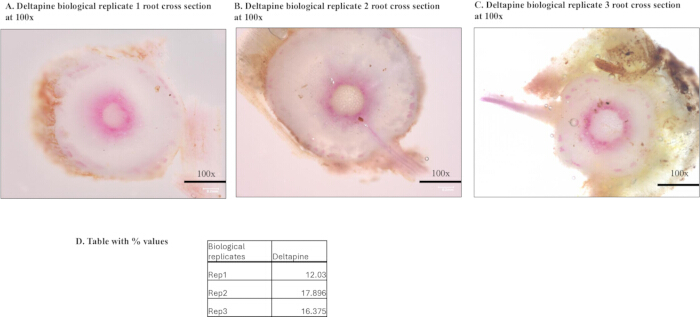
الشكل 6: صبغ اللجنين والتحليل الكمي للمقاطع العرضية لجذور Deltapine 16. مقاطع عرضية لجذور مصبوغة باللجنين لثلاث مكررات بيولوجية من الصنف الحساس Deltapine 16 بتكبير 100x: (A) المكرر البيولوجي 1، و(B) المكرر البيولوجي 2، و(C) المكرر البيولوجي 3. (D) النسبة المئوية للمساحة المصبوغة للمكررات البيولوجية الثلاثة والتي تم تحديدها بواسطة تحليل ImageJ الكمي. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
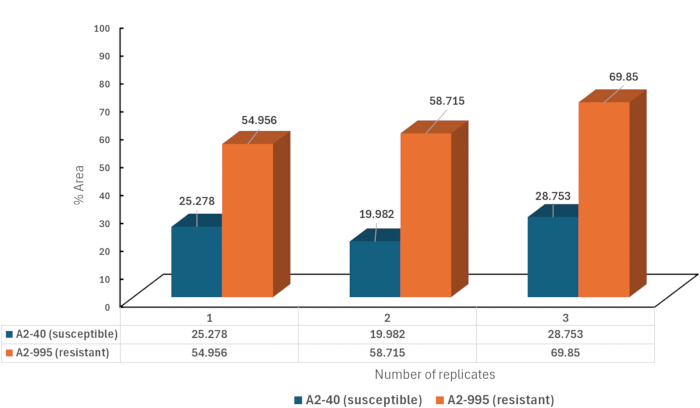
الشكل 7: التحليل الكمي لصبغ اللجنين في التركيبات الوراثية للقطن A2-40 و A2-995. النسبة المئوية للمنطقة المصبوغة التي تم تحديدها بواسطة تحليل ImageJ لثلاث مكررات بيولوجية من التركيبة الوراثية القابلة للإصابة A2-40 والتركيبة الوراثية المقاومة A2-995. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
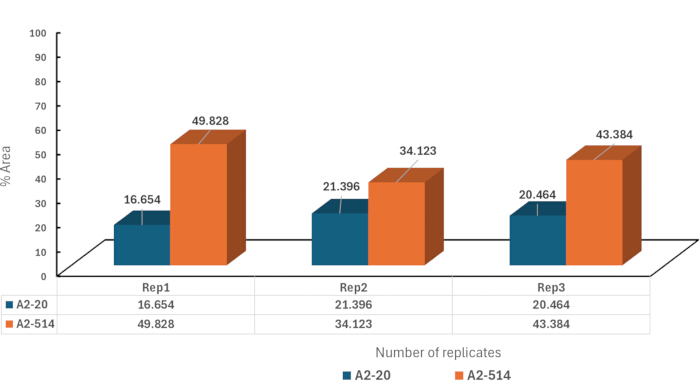
الشكل 8: التحليل الكمي لتصبغ اللجنين في التركيبات الوراثية للقطن A2-20 وA2-514. النسبة المئوية للمنطقة المصبوغة التي تم تحديدها بواسطة تحليل ImageJ لثلاث مكررات بيولوجية من التركيب الوراثي القابل للإصابة A2-20 والتركيب الوراثي المقاوم A2-514. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
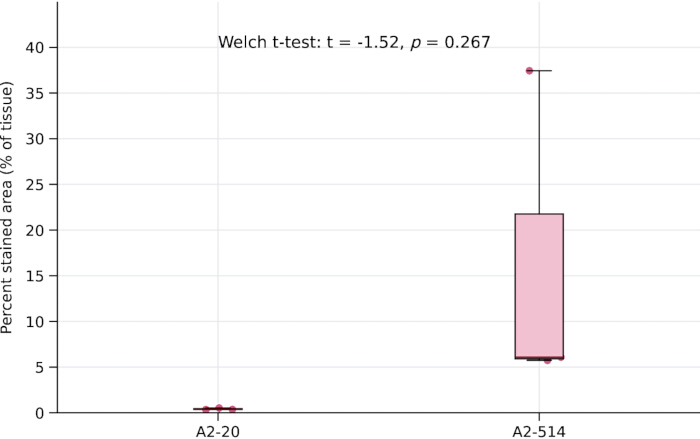
الشكل 9: التكميم ذو العتبة الموحدة لصبغ اللجنين في التركيبات الوراثية للقطن A2-20 وA2-514. النسبة المئوية للمساحة المصبوغة في التركيبة الوراثية القابلة للإصابة A2-20 والتركيبة الوراثية المقاومة A2-514 بعد تحليل الصور بالعتبة الموحدة. أُجريت المقارنة الإحصائية باستخدام اختبار Welch's t-test (t = −1.52, p = 0.267). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
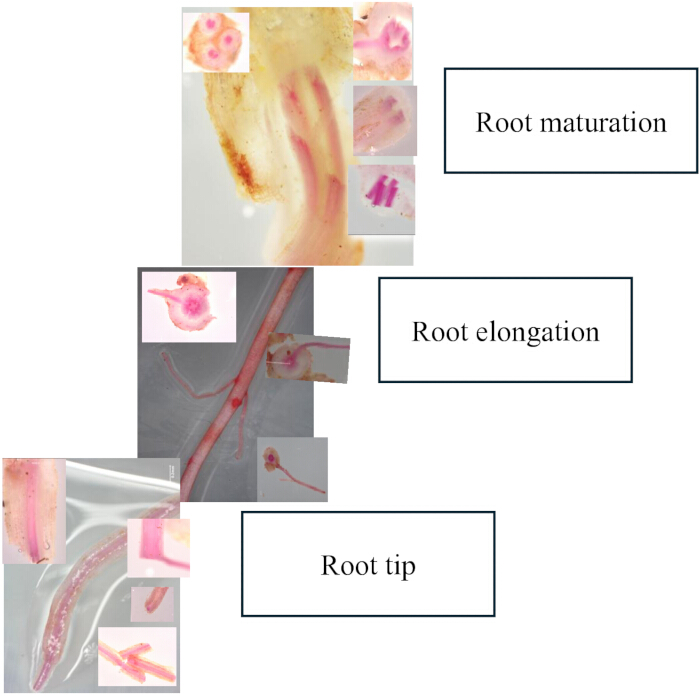
الشكل 10: تصوير صبغة اللجنين عبر مناطق الجذور المختلفة. صور تمثيلية توضح صبغ اللجنين في مناطق نضج الجذور، واستطالة الجذور، وقمة الجذر. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الشكل التكميلي 1: صبغة اللجنين في المقاطع العرضية لسوق تراكيب وراثية من القطن المقاومة والحساسة. مقاطع عرضية للساق مصبوغة باللجنين بتكبير 100x لكل من (A) الصنف الحساس A2-20، و(B) الصنف المقاوم A2-514، و(C) الصنف الحساس A2-40، و(D) الصنف المقاوم A2-995. يرجى النقر هنا لتحميل هذا الملف.
المناقشة
يعمل اللجنين المرتبط بجدران الخلايا النباتية كحاجز فيزيائي مهم ضد الآفات، بما في ذلك النيماتودا. في الدراسة الحالية، أظهرت التركيبات الوراثية للقطن المقاومة والحساسة اختلافات بصرية واضحة في صبغ اللجنين، متبعةً نمطاً مشابهاً لما تم الإبلاغ عنه سابقاً في الأصناف المقاومة والحساسة لفطر Fusarium. وقد سمح الصبغ بتصور واضح لتوزيع اللجنين عبر مناطق الجذور — منطقة النضج، والاستطالة، وقمة الجذر — حيث زادت كثافة اللجنين تدريجياً من الجزء العلوي للجذر باتجاه القمة (الشكل 10). وبينما توفر هذه الأنماط رؤية تشريحية مفيدة، لم يتم تقييم ديناميكيات اللجنين استجابةً للإصابة بالنيماتودا في الدراسة الحالية، وهو أمر يتطلب تأكيداً في الأبحاث المستقبلية. وتشير الدراسات السابقة إلى أن وجود الممرض يمكن أن يحفز الاصطناع الحيوي للجنين، مما يعزز الحاجة إلى فحص تغيرات اللجنين تحت ضغط النيماتودا. ومن شأن دمج التحليلات البيوكيميائية لكمية اللجنين وتركيبه أن يعزز بشكل أكبر تفسير أنماط الصبغ الملاحظة في هذه التركيبات الوراثية. وبشكل عام، تسلط هذه النتائج الضوء على دور الدفاعات الهيكلية التي يتوسطها اللجنين في مقاومة نيماتودا تعقد الجذور الكلوية في القطن، وتثبت فائدة الصبغ بالفلوروغلوسينول في توصيف هذه السمات. إن الاستمرار في دمج المناهج التشريحية والبيوكيميائية والجزيئية سيعمق فهم الاصطناع الحيوي للجنين ومساهمته في تطوير مقاومة مستدامة لنيماتودا تعقد الجذور الكلوية.
الإفصاحات
ليس لدى المؤلفين أي تضاربات مصالح للإفصاح عنها.
إخلاء المسؤولية
تعد وزارة الزراعة الأمريكية (USDA) جهة تقديم وتوظيف وإقراض تتيح تكافؤ الفرص. إن ذكر الأسماء التجارية أو المنتجات التجارية في هذا المنشور هو لغرض تقديم معلومات محددة فقط، ولا يعني التوصية بها أو تأييدها من قبل وزارة الزراعة الأمريكية. إن النتائج والاستنتاجات الواردة في هذا المقال تخص المؤلف (أو المؤلفين)، ولا ينبغي تفسيرها على أنها تمثل أي قرار أو سياسة رسمية لوزارة الزراعة الأمريكية أو حكومة الولايات المتحدة هنا.
شكر وتقدير
يتوجه المؤلفون بالشكر إلى الدكتورة Katherine Parys لتوفير إمكانية الوصول إلى مرافق مختبر المجهر المستخدمة في هذه الدراسة. كما يشكر المؤلفون الدكتور Junping Chen والدكتور Abdulraheem على مقترحاتهم ومساعدتهم في تحسين المخطوطة. تم دعم هذا البحث من خلال مشروع USDA-ARS رقم 6066-21000-053-00D.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| تربة زراعية للتحكم في الرطوبة | Miracle-Gro | 073561005197 032247557832 | موقع Amazon الإلكتروني |
| مجهر | Keyence VHX | VHX3000 | يمكن استخدام أي مجهر حقل مضيء مماثل |
| شفرات حلاقة معقمة | Workpro | W018057 | موقع Amazon الإلكتروني |
| لوح تقطيع | Freshware | 15.75"L x 9.8"W x 0.3"Th | موقع Amazon الإلكتروني |
| شرائح وأغطية شرائح | Amscope | BS-50P-100S-22X4 | يمكن استخدام أي علامة تجارية. هذه العلامة متوفرة على amazon. |
| ماء معقم/ ماء مقطر/ ماء معقم بالأتوكلاف | Gibco | 15230147 | يمكن استخدام أي علامة تجارية/ ماء معقم بالأتوكلاف |
| صبغة الفلوروغلوسينول | Fischer Scientific | AC241761000 | متوفرة لدى Fischer Scientific |
| حمض HCl مركز | Fischer Scientific | CAS: 7647-01-0 | متوفر لدى Fischer Scientific |
| إيثانول مطلق | Fischer Scientific | 64-17-5 | متوفر لدى Fischer Scientific |
| أصص زراعية | BTPLASTIK | B0DSBQMXHN | يمكن استخدام أي أصص بلاستيكية، متوفرة على amazon |
| أطباق بتري | Kingdder | B0BS95MCGS | متوفرة على amazon ويمكن استخدام أي علامة تجارية أخرى |
| مناشف ورقية | Tork | MB540A | متوفرة على amazon ويمكن استخدام أي علامة تجارية أخرى |
| Image J | برنامج | متوفر عبر الإنترنت | برنامج مجاني متاح للاستخدام |
المراجع
- Robinson AF. Reniform in US cotton: when, where, why, and some remedies. Annu Rev Phytopathol. 2007;45(1):263-88.
- Li R, Erpelding JE, Stetina SR. Genome-wide association study of Gossypium arboreum resistance to reniform nematode. BMC Genet. 2018;19(1):52.
- Koebernick JC et al. Response to nematicide by cotton genotypes varying in reniform nematode resistance. Crop Sci. 2021;61(2):929-35.
- Singh B et al. Reniform nematode impact on cotton growth and management strategies: A review. Agron J. 2023;115(5):2140-58.
- Riga E. The effects of Brassica green manures on plant parasitic and free-living nematodes used in combination with reduced rates of synthetic nematicides. J Nematol. 2011;43(2):119.
- Khanal C, McGawley EC, Overstreet C, Stetina SR. The elusive search for reniform nematode resistance in cotton. Phytopathology. 2018;108(5):532-41.
- Moura JCMS et al. Abiotic and biotic stresses and changes in the lignin content and composition in plants. J Integr Plant Biol. 2010;52(4):360-76.
- Schutzendubel A, Polle A. Plant responses to abiotic stresses: heavy metal-induced oxidative stress and protection by mycorrhization. J Exp Bot. 2002;53(372):1351-65.
- Liu Q et al. Transcriptional and physiological analyses identify a regulatory role for hydrogen peroxide in the lignin biosynthesis of copper-stressed rice roots. Plant Soil. 2015;387(1-2):323-36.
- Fujimoto T, Mizukubo T, Abe H, Seo S. Sclareol induces plant resistance to root-knot nematode partially through ethylene-dependent enhancement of lignin accumulation. Mol Plant Microbe Interact. 2015;28(4):398-407.
- Wang Y et al. CmMYB19 over-expression improves aphid tolerance in chrysanthemum by promoting lignin synthesis. Int J Mol Sci. 2017;18(3):619.
- Mandal S, Kar I, Mukherjee AK, Acharya P. Elicitor-induced defense responses in Solanum lycopersicum against Ralstonia solanacearum. ScientificWorldJournal. 2013;2013(1):561056.
- Santiago R, Barros-Rios J, Malvar RA. Impact of cell wall composition on maize resistance to pests and diseases. Int J Mol Sci. 2013;14(4):6960-80.
- Gallego-Giraldo L et al. Elicitors and defense gene induction in plants with altered lignin compositions. New Phytol. 2018;219(4):1235-51.
- Smit F, Dubery IA. Cell wall reinforcement in cotton hypocotyls in response to a Verticillium dahliae elicitor. Phytochemistry. 1997;44(5):811-15.
- Mendu L et al. Lignin and cellulose content differences in roots of different cotton cultivars associated with different levels of Fusarium wilt race 4 (FOV4) resistance-response. J Agric Food Res. 2022;10:100420.
- Tiwari RK et al. Mechanistic insights on lignin-mediated plant defense against pathogen infection. Plant Physiol Biochem. 2025;228:110224.
- Ralph J et al. Lignins: Natural polymers from oxidative coupling of 4-hydroxyphenyl-propanoids. Phytochem Rev. 2004;3(1):29-60.
- Dixon RA et al. The phenylpropanoid pathway and plant defence-a genomics perspective. Mol Plant Pathol. 2002;3(5):371-90.
- Vance CP, Kirk TK, Sherwood RT. Lignification as a mechanism of disease resistance. Annu Rev Phytopathol. 1980;18(1):259-88.
- Nicholson RL, Hammerschmidt R. Phenolic compounds and their role in disease resistance. Annu Rev Phytopathol. 1992;30(1):369-89.
- Shah SWA et al. Lignin-based additive materials: A review of current status, challenges, and future perspectives. Addit Manuf. 2023;74:103711.
- Yadav S, Chattopadhyay D. Lignin: the building block of defense responses to stress in plants. J Plant Growth Regul. 2023;42(10):6652-66.
- Weng JK, Chapple C. The origin and evolution of lignin biosynthesis. New Phytol. 2010;187(2):273-85.