يصف هذا البروتوكول التحديد الكمي المستهدف لمركبي الروتين والكيرسيتين في مستخلص براعم Styphnolobium japonicum باستخدام تقنية HPLC، ويقيم تأثير المستخلص في نماذج الخلايا الدبقية الصغيرة، والمزارع المشتركة من الخلايا الدبقية الصغيرة والعصبونات، ونماذج ارتفاع ضغط الدم الناجم عن نقص أكسيد النيتريك. ويربط مسار العمل بين تحضير المستخلص والنقاط النهائية المتعلقة بالالتهاب العصبي، والإجهاد العصبي، وضغط الدم، والنواة المجاورة للبطين.
مقالة بحثية
مستخلص Styphnolobium japonicum المكمّم بواسطة HPLC يقلل من التهاب الخلايا الدبقية الصغيرة وارتفاع ضغط الدم في الجرذان المعالجة بـ L-NAME
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
يمكن أن يساهم الالتهاب العصبي في النواة المجاورة للبطين (PVN) في منطقة تحت المهاد في التحفيز السمبثاوي وارتفاع ضغط الدم. قمنا بتقييم مستخلص براعم Styphnolobium japonicum (SJBE؛ المعروف تاريخيًا باسم Sophora japonica) والذي تم تحديد كمية الروتين والكيرسيتين فيه باستخدام الكروماتوغرافيا السائلة عالية الأداء (HPLC) الموجهة. تم اختبار المستخلص في خلايا الميكروغليا BV-2 المحفزة بالأنجيوتنسين II (Ang II)، والمزارع المشتركة للعوامل الذائبة بين BV-2/mHypoA-2/10، وحالة إجهاد عصبي ناتجة عن الصوديوم المرتفع in vitro، وفي جرذان تعاني من ارتفاع ضغط الدم الناجم عن نقص أكسيد النيتريك المستحث بواسطة Nω-nitro-L-arginine methyl ester (L-NAME). وعند تركيزات عمل غير سامة للخلايا، قلل SJBE من مؤشرات الالتهاب والإجهاد التأكسدي في خلايا BV-2، وارتبط بزيادة مؤشرات الإنزيم المحول للأنجيوتنسين 2 (ACE2)، ومستقبل Mas (MasR)، والأنجيوتنسين-(1-7) [Ang-(1-7)]. وفي المزارع المشتركة، قلل SJBE من الانتقال الالتهابي والإجهاد العصبي. أدى تناول SJBE عن طريق الفم إلى خفض قياسات ضغط الدم بطريقة cuff-tail، وارتبط بزيادة ACE2/MasR و Ang-(1-7) في النواة المجاورة للبطين (PVN)، وانخفاض صبغ Iba-1 و c-Fos، وانخفاض مستويات النورإبينفرين والسيتوكينات في الدورة الدموية. قدم MLN-4760 دعمًا وظيفيًا in vitro لمشاركة ACE2، ولكن لم يتم إجراء حصر للمسار in vivo أو دراسات حركية دوائية للتعرض الدماغي. لذا، تدعم النتائج وجود ارتباط بين العلاج بـ SJBE، وتقليل إشارات الالتهاب العصبي، وانخفاض ضغط الدم، دون إثبات السببية في المسارات المركزية.
المقدمة
تتم دراسة المستخلصات النباتية بشكل متزايد كمنظمات متعددة المكونات للأمراض الوعائية والمناعية العصبية. ويعتمد تفسير نتائجها على تحديد دقيق لمصدر المادة، والنطاق التحليلي، والاتساق الكيميائي. وتنتج نبتة Styphnolobium japonicum (L.) Schott، المعروفة تاريخياً باسم Sophora japonica L.، مادة براعم الزهور المجففة المسماة Flos Sophorae Immaturus أو Huai Mi1,2. ويعد الروتين (Rutin) مؤشراً رئيسياً للجودة في هذه المادة، والتي تحتوي أيضاً على فلافونيدات أخرى نشطة بيولوجياً3. وقد قيمت دراسات الاستخلاص المناهج التقليدية والمكثفة لاستعادة الروتين والفلافونيدات ذات الصلة4,5,6. كما تصف دراسة حديثة سير عمل أكثر رفقاً بالبيئة لاستخلاص الروتين من S. japonicum7. ويوفر تحليل HPLC المستهدف تقديراً كمياً فعالاً للمؤشرات المحددة مسبقاً، بينما يتطلب تقييم الاتساق الكيميائي الأوسع والاتساق بين التشغيلات استخدام البصمة الكروماتوغرافية أو تحليل المكونات المتعددة؛ وبناءً على ذلك، لا ينبغي تفسير قياسات الروتين والكيرسيتين الحالية على أنها ملف كيميائي نباتي كامل.
يوفر الروتين والكيرسيتين أساساً فارماكولوجياً منطقياً لدراسة المستخلصات المشتقة من S. japonicum في الالتهاب الوعائي العصبي. وقد ارتبطت تحضيرات الروتين وأزهار S. japonicum بتقليل إشارات الالتهاب، بما في ذلك الاستجابات المرتبطة بـ NF-kappaB والالتهاب العصبي8. كما تربط النماذج التجريبية الروتين بتقليل الالتهاب العصبي وإصابة الأنسجة المرتبطة بـ NF-kappaB9. كما ارتبط الكيرسيتين بالنشاط الحيوي القلبي الوعائي وتحسين توازن الالتهاب والأكسدة10,11. وفي نماذج الخلايا الدبقية الصغيرة، يمكن للكيرسيتين كبح التنشيط، والإجهاد التأكسدي، وإشارات الالتهاب المرتبطة بمستقبل Toll-like receptor 4 (TLR4)12,13.
لا يُعد ارتفاع ضغط الدم مجرد اضطراب وعائي، بل يمكن للدوائر الالتهابية المركزية أن تدعم أيضاً الدافع السمبثاوي. وتعمل النواة المجاورة للبطين (PVN) على دمج الإشارات الغدية العصبية واللاإرادية التي تنظم التوتر القلبي الوعائي. وقد رُبطت السيتوكينات التي تفرزها الخلايا الدبقية الصغيرة في الدماغ وفي النواة المجاورة للبطين بارتفاع ضغط الدم العصبي14، كما يمكن للخلايا الدبقية الصغيرة في النواة المجاورة للبطين استشعار الاضطرابات الهيموديناميكية وتعزيز الاستثارة السمبثاوية15. وتجعل هذه الملاحظات من التواصل بين الخلايا الدبقية الصغيرة والعصبونات داخل النواة المجاورة للبطين هدفاً ذا صلة للتدخلات التي تهدف إلى تقليل ارتفاع ضغط الدم العصبي16.
يوفر محور مستقبل ACE2/Ang-(1-7)/Mas (MasR) التابع لنظام الرينين-أنجيوتنسين مساراً وقائياً واحداً ضمن هذه الشبكة المركزية17,18. ويؤدي الإفراط في تعبير ACE2 في النواة جنيب البطينية (PVN) إلى تخفيف ارتفاع ضغط الدم الناجم عن أنجيوتنسين II، وقد رُبط ذلك بتقليل الالتهاب العصبي19. كما تقوم إشارات Ang-(1-7) الداخلية في النواة جنيب البطينية بتعديل التدفق السمبثاوي20. ويمكن لـ Ang II تفعيل مسارات الأكسدة والاختزال المرتبطة بمستقبل أنجيوتنسين II من النوع 1 (AT1)/TLR4 في الخلايا الدبقية الصغيرة بالنواة جنيب البطينية، مما يربط إجهاد الرينين-أنجيوتنسين بالالتهاب العصبي21. وقد استُخدمت حالة الخلايا ذات الصوديوم العالي فقط كتحدٍ إجهادي in vitro، وليس كبديل لنموذج الحيوان المعالج بـ L-NAME. ولا يزال غير معروف ما إذا كان مستخلص براعم S. japonicum (SJBE)، الذي تم تقدير كميات الروتين والكيرسيتين فيه بواسطة تقنية HPLC المستهدفة، يمكنه كبح التهاب الخلايا الدبقية الصغيرة عند هذه الواجهة بين الخلايا الدبقية والعصبونات. يجمع سير العمل الحالي بين التقدير الكمي للمؤشرات المستهدفة، والزراعة المشتركة للخلايا الدبقية الصغيرة والعوامل الذائبة، ونماذج ارتفاع ضغط الدم الناجم عن نقص أكسيد النيتريك المستحث بـ L-NAME. وهو مخصص للمقارنة القائمة على الفرضيات لتحضير محدد من SJBE، وليس للتوصيف الكيميائي النباتي الشامل أو إثبات التعرض الدماغي؛ كما أن تجربة L-NAME لا تحاكي تحديداً ارتفاع ضغط الدم العصبي الناجم عن النواة جنيب البطينية. هنا، اختبرنا ما إذا كان SJBE يثبط التهاب الخلايا الدبقية الصغيرة الناجم عن Ang II، ويحد من إشارات الالتهاب في عصبونات تحت المهاد، ويخفض ضغط الدم في الجرذان المعالجة بـ L-NAME، وما إذا كانت هذه النتائج مرتبطة بمؤشرات ACE2/Ang-(1-7)/MasR.
البروتوكول
تمت الموافقة على جميع الإجراءات الحيوانية من قبل لجنة مراجعة أخلاقيات البحوث الطبية الحيوية بجامعة شانشي داتونغ (رقم الموافقة 2021029؛ فترة الموافقة من أغسطس 2021 إلى فبراير 2024)، وأُجريت وفقاً للإرشادات المؤسسية الخاصة برعاية واستخدام حيوانات التجارب. تدرج الكواشف والمعدات المستخدمة في جدول المواد.
المواد والكواشف
براعم زهرية مجففة وغير مفتوحة لـ Styphnolobium japonicum (L.) Schott (مرادف. Sophora japonica تم استخدام (L.; Fabaceae; Flos Sophorae Immaturus/Huai Mi). وتم التحقق من صحة المادة النباتية من خلال مقارنتها بمادة مرجعية معتمدة من Sophorae Flos من المعاهد الوطنية للرقابة على الأغذية والأدوية (NIFDC)، بكين، الصين (رقم الكتالوج 121270؛ رقم التشغيلة 121270-201403)، وذلك قبل عملية الاستخلاص. واستُخدم كل من الروتين (98%، HPLC) والكيرسيتين (98%، HPLC) كمعايير مرجعية. كما استُخدم كل من Ang II وMLN-4760 وL-NAME والفالسارتان كما هو موضح. أما الكواشف والمعدات الأخرى فهي مدرجة في الـ جدول المواد.
تحضير ومراقبة جودة مستخلص براعم S. japonicum
تم تجفيف براعم الأزهار في الفرن عند 80 °C حتى الوصول إلى وزن ثابت، ثم طُحنت ومُررت عبر منخل بفتحات 85-mesh. خضع المسحوق لاستخلاص بالارتجاع مرتين باستخدام إيثانول بتركيز 85% وبنسبة مادة إلى مذيب قدرها 1:20 (w/v) عند 80 °C لمدة 1.5 h لكل عملية استخلاص. جُمعت الرشاحات ورُكزت تحت ضغط منخفض عند 60 °C للحصول على مستخلص كثيف، ثم جُمِد مسبقاً عند −80 °C، ووُضع في جهاز التجفيف بالتجميد لمدة 48–72 h. حُسب عائد الاستخلاص بقسمة كتلة المستخلص الجاف على كتلة العقار الخام الجاف، وخُزنت عينات مقسمة من مسحوق SJBE في ظروف تمنع تكرار دورات التجميد والإذابة أو التعرض للرطوبة.
أُجري تحليل الكروماتوغرافيا السائلة عالية الأداء (HPLC) باستخدام جهاز مجهز بكاشف مصفوفة الصمامات الثنائية الضوئية للأشعة فوق البنفسجية والمرئية (UV-visible photodiode-array detector). فُصلت المواد المراد تحليلها على عمود C18 ذو طور معكوس (250 mm × 4.6 mm, 5 µm) باستخدام الميثانول والماء (65:35, v/v) بمعدل تدفق ثابت قدره 1.0 mL/min. حوفظ على درجة حرارة العمود عند 35 °C، وضُبط طول موجة الكشف عند 360 nm، وكان حجم الحقن 20 µL، وزمن التحصيل 20 min. حُضر مستخلص SJBE بتركيز 1.0 mg/mL في الميثانول. كما حُضرت سبعة مستويات معايرة للروتين بتركيزات 10 µg/mL، و25 µg/mL، و50 µg/mL، و100 µg/mL، و200 µg/mL، و300 µg/mL، و400 µg/mL، وسبعة مستويات معايرة للكيرسيتين بتركيزات 0.5 µg/mL، و1 µg/mL، و2.5 µg/mL، و5 µg/mL، و10 µg/mL، و25 µg/mL، و50 µg/mL. مُررت المحاليل القياسية والعينات عبر مرشحات غشائية من بولي تيترا فلورو إيثيلين بمسامية 0.22 µm، مع التخلص من أول 0.5 mL من الرشاحة، ونقل المتبقي إلى قنينات HPLC. حُقن كل مستوى معايرة مكرراً، وحُقن كل تحضير من مستخلص SJBE ثلاث مرات. تم التعرف على الروتين والكيرسيتين من خلال مطابقة زمن الاحتفاظ مع المحاليل القياسية الأصلية في حدود ±2% وبواسطة أطياف مصفوفة الصمامات الثنائية الضوئية المتوافقة. تم تقدير كمية كل علامة كيميائية باستخدام المعايرة بالمحلول القياسي الخارجي، وأُعيد تحليل العينات المخففة عندما كانت استجابة الكاشف خارج نطاق المعايرة المطبق.
الأداء التحليلي، وملاءمة النظام، وتقييم التشغيلة
تم تقييم الخطية باستخدام انحدار المربعات الصغرى لمساحة القمة مقابل التركيز عبر المستويات السبعة المحددة. تم قبول المعايرة عندما كانت قيمة R2 0.999 على الأقل، ولم يظهر مخطط البواقي أي اتجاه جهازي. تم تحديد حد الكشف وحد التقدير الكمي عند نسب إشارة إلى ضجيج تبلغ 3 و 10 تقريبًا، على التوالي. تم إثبات النوعية باستخدام عينة ضابطة من الميثانول، ومحلول قياسي مختلط، وعينة SJBE؛ وتم التأكد من عدم وجود تداخلات مشتركة في الشطف وتطابق أطياف المادة التحليلية مع المعايير المرجعية.
تم تقييم دقة الحقن باستخدام ست حقنات متتالية من معيار مختلط. وتم تقييم الدقة خلال اليوم الواحد باستخدام ست تقديرات أُجريت في اليوم نفسه، بينما قُيّمت الدقة بين الأيام على مدار ثلاثة أيام متتالية. كما تم تقييم قابلية التكرار باستخدام ستة محلول SJBE حُضرت بشكل مستقل، وقُيّمت استقرارية جهاز أخذ العينات التلقائي عند 0 h و 4 h و 8 h و 12 h و 24 h. وتم تقييم الاسترداد عند 80% و 100% و 120% من المستوى الطبيعي للمؤشر باستخدام ثلاث تحضيرات مضافة بشكل مستقل عند كل مستوى. وقُبلت دقة الحقن عندما كان انحراف RSD لمساحة القمة ≤2.0%؛ وقُبلت الدقة وقابلية التكرار والاستقرارية عندما كان RSD ≤3.0%؛ وقُبل متوسط الاسترداد في النطاق 95.0%–105.0% مع RSD للاسترداد ≤3.0%.
قبل كل تسلسل تحليلي، تم حقن المعيار المختلط ست مرات. وقُبلت ملاءمة النظام عندما كان الانحراف المعياري النسبي (RSD) لزمن الاحتباس ≤1.0%، والانحراف المعياري النسبي (RSD) لمساحة القمة ≤2.0%، وكانت درجة الفصل ≥1.5، وعامل التذييل ≤2.0، وعدد الصفائح النظرية لقمة الروتين 5,000 على الأقل. وقد تمت إعادة توازن العمود وتكرار اختبار ملاءمة النظام كلما لم يتم استيفاء أي من هذه المعايير.
تم تحضير وتحليل ثلاث دفعات مستقلة من مستخلصات SJBE. سُجل الكروماتوغرام الكامل عند 360 نانومتر لكل دفعة، وحدد الروتين (rutin) كقمة مرجعية، وتمت محاذاة القمم المشتركة القابلة للتكرار، وحُسب زمن الاستبقاء النسبي، ومساحة القمة النسبية، والتشابه العام للملف الكروماتوغرافي. قُبل اتساق البصمة على مستوى الدفعات عندما يكون التشابه ≥0.90، والانحراف المعياري النسبي (RSD) لزمن الاستبقاء النسبي للقمم المشتركة ≤2.0%، والانحراف المعياري النسبي (RSD) لمساحة القمة النسبية ≤5.0%. كما تم تسجيل محتويات الروتين والكيرسيتين (quercetin) لكل دفعة، إلى جانب المتوسط العام والانحراف المعياري ومعامل الاختلاف.
زراعة الخلايا والمعاملات
تم الحصول على خط خلايا BV-2 الدبقية الصغيرة للفئران وخط خلايا mHypoA-2/10 العصبية المهادية للفئران من مصادر تجارية. تم إذابة الخلايا من مخزونات موثقة من المورد، وتكثيرها لمرتين (two passages)، والتحقق من هوية النوع باستخدام طريقة PCR النوعية، والتأكد من خلوها من الميكوبلازما قبل التجارب وبعد إذابة كل قارورة جديدة. وقد استُخدمت الخلايا التي تتراوح ممراتها بين 3 و20.
تم استزراع خلايا BV-2 وmHypoA-2/10 في وسط DMEM عالي الجلوكوز مدعم بـ 10% مصل جنين البقر و1% بنسيلين-ستريبتومايسين عند درجة حرارة 37 °C في حاضنة رطبة تحتوي على 5% CO₂. تم تغيير الوسط كل 2 d، وتم تمرير الخلايا عند وصول درجة التلاقي إلى 70%–80% باستخدام 0.25% trypsin-EDTA. زُرعت الخلايا قبل 24 h من المعالجة، وبدأت التجارب عند وصول درجة التلاقي إلى 70%–80%.
لفحص الحيوية، تم تعريض خلايا BV-2 لـ SJBE بتركيزات 0 µg/mL، أو 25 µg/mL، أو 50 µg/mL، أو 100 µg/mL، أو 200 µg/mL، أو 400 µg/mL لمدة 24 h. وبالنسبة لتجارب الالتهاب، تم تحضين الخلايا مسبقاً مع SJBE بالتركيز المحدد في الشكل أو مع rutin (50 µmol/L) لمدة 1 h، وبعد ذلك تمت إضافة Ang II (100 nmol/L) دون استبدال الوسط المزرعي لمدة 24 h إضافية. وفي تجارب تثبيط ACE2، تمت إضافة MLN-4760 (10 µmol/L) قبل 30 min من إضافة SJBE، ثم أضيف Ang II بعد ساعة واحدة من إضافة SJBE، وحوفظ على جميع العوامل طوال فترة التحفيز البالغة 24 h. استُخدم SJBE بتركيز 100 µg/mL في التجارب الميكانيكية اللاحقة. تم تحضير Ang II و SJBE في وسط استزراع معقم، بينما حُضر MLN-4760 و rutin كمخزونات في dimethyl sulfoxide. تم الحفاظ على التركيز النهائي لـ dimethyl sulfoxide عند 0.1% (v/v) في كل مجموعة مطبقة، بما في ذلك مجموعة التحكم بالمركبة. أُجريت ثلاث تجارب استزراع مستقلة، وتم حساب متوسط الآبار التقنية داخل كل تجربة.
اختبار حيوية الخلايا
تم استزراع خلايا BV-2 في أطباق ذات 96 بئراً بكثافة 5 × 10³ خلية/بئر وحضنها لمدة 24 h. تم استبدال الوسط بوسط جديد يحتوي على 0 µg/mL أو 25 µg/mL أو 50 µg/mL أو 100 µg/mL أو 200 µg/mL أو 400 µg/mL من SJBE. بعد 24 h، أُضيف 10 µL من كاشف CCK-8، وحُضنت الخلايا عند 37 °C لمدة 1 h. تم قياس الامتصاصية عند 450 nm، وعُبّر عن حيوية الخلايا بالنسبة إلى آبار التحكم غير المعالجة. استُخدمت تحضيرات استزراع مستقلة كمكررات بيولوجية، واستُخدمت الآبار التقنية فقط لحساب المتوسطات داخل التجربة الواحدة.
كشف مستوى أنواع الأكسجين التفاعلية (ROS)
بعد المعالجة، حُضنت خلايا BV-2 في وسط خالٍ من المصل يحتوي على 10 µmol/L من DCFH-DA عند درجة حرارة 37 °C في الظلام لمدة 30 min. غُسلت الخلايا مرتين بمحلول PBS، ثم فُصلت، ومُررت عبر مصفاة خلايا بقطر 40 µm، وأعيد تعليقها في محلول PBS مبرد بالثلج. تم جمع ما لا يقل عن 10,000 حدث أحادي لكل عينة باستخدام جهاز قياس التدفق الخلوي، مع إثارة عند 488 nm وقناة انبعاث FITC/530 ± 15 nm. تم تحديد نطاق مجتمع الخلايا الرئيسي بناءً على مساحة التشتت الأمامي والجانبي، واستُبعدت الخلايا المزدوجة باستخدام مساحة التشتت الأمامي مقابل الارتفاع، كما حُددت حدود الفلورة باستخدام عينة ضابطة غير مصبوغة. لم تكن هناك حاجة لتعويض طيفي لهذا المقايسة أحادية اللون. طُبق نفس نموذج النطاق على جميع العينات المرمزة، وتم تسجيل متوسط شدة الفلورة.
صبغة TUNEL
بعد الاستزراع المشترك، تم تثبيت الخلايا العصبية في الحجرة السفلية باستخدام 4% paraformaldehyde لمدة 30 min، وغسلها ثلاث مرات بمحلول PBS، ثم نفاذيتها باستخدام 0.3% Triton X-100 في PBS لمدة 5 min. أضيف ما مجموعه 50 µL من خليط تفاعل TUNEL لكل بئر، وحُضنت الخلايا عند 37 °C في الظلام لمدة 60 min. غُسلت العينات ثلاث مرات، وصُبغت النوى صبغة تباينية باستخدام 1 µg/mL DAPI لمدة 10 min، ثم تم تثبيت العينات. وبالنسبة لكل من خمس استزراعات مشتركة حُضرت بشكل مستقل لكل مجموعة، تم تصوير ثلاثة حقول محددة مسبقاً وغير متداخلة بتكبير 200× باستخدام إعدادات تعريض متطابقة. تم قياس النوى الموجبة لـ TUNEL كنسبة مئوية من النوى الموجبة لـ DAPI باستخدام عتبة ثابتة في برنامج ImageJ. وحُسب متوسط الحقول الثلاثة للحصول على قيمة واحدة على مستوى المستنبت قبل إجراء التحليل الإحصائي.
تجربة الزراعة المشتركة للعصبونات والخلايا الدبقية الصغيرة
استُخدمت إدراجات Transwell ذات أربعة وعشرين بئراً، مزودة بأغشية بولي كربونات بمسامية 0.4 µm ومساحة نمو تبلغ حوالي 0.33 cm2، لنمذجة التواصل غير المتلامس الذي تتوسطه عوامل ذائبة. تم استزراع خلايا mHypoA-2/10 في الآبار السفلية بكثافة 1 × 10⁵ خلية في 600 µL من الوسط، واستُزرعت خلايا BV-2 في الإدراجات بكثافة 2 × 10⁵ خلية في 100 µL من الوسط. حُضنت الخلايا طوال الليل قبل عملية التجميع. ثم أُضيفت Ang II وSJBE وMLN-4760 والروتين (rutin) ومذيباتها المقابلة إلى حجرة BV-2 العلوية وفقاً لتسلسل المعالجة الموضح أعلاه. وبالنسبة لمجموعات إجهاد الصوديوم العالي الإضافية، أُضيف NaCl إلى الحجرة العصبية السفلية لزيادة التركيز النهائي بمقدار 30 mmol/L. حُفظت المستنبتات المشتركة المجمعة لمدة 24 h.
جُمِع الوسط من الحجرة العلوية وخلايا BV-2 لإجراء تحليلات السيتوكينات وإشارات الخلايا الدبقية الصغيرة، بينما جُمِع الوسط من الحجرة السفلية والخلايا العصبية بشكل منفصل لإجراء تحليلات Ang-(1-7)، وqPCR، واللطخة المناعية، وتحليلات TUNEL. واعتُبِر كل زوج مكوّن من غشاء إدخال وبئر سفلي كوحدة تجريبية واحدة، وأُجريت ثلاث تجارب زراعة مشتركة مستقلة. وقد قيّم هذا التكوين تبادل العوامل الذائبة، ولكن لم يكن بمقدوره إثبات أن الخلايا الدبقية الصغيرة هي الهدف المباشر الوحيد لـ SJBE. ونظراً لعدم إدراج ضابط متساوي التوتر، لم يكن من الممكن في حالة NaCl التمييز بين التأثيرات الخاصة بالصوديوم والتأثيرات الاسموزية.
نموذج حيواني لارتفاع ضغط الدم
تم الحصول على ذكور جرذان من سلالة Wistar خالية من مسببات الأمراض المحددة، تتراوح أعمارها بين 6 و8 أسابيع وتزن 180–220 g، من مصادر تجارية. تم إيواء ثلاثة من الجرذان في كل قفص عند درجة حرارة 22 °C ± 2 °C ورطوبة نسبية تتراوح بين 50%–60% تحت دورة ضوء/ظلام مدتها 12 h مع إتاحة الوصول الحر إلى الغذاء والماء. تم استبدال الفرشة مرتين أسبوعياً، وأُعطيت الحيوانات فترة تأقلم لمدة 7 d. تمت مراقبة الحيوانات يومياً، وتسجيل وزن الجسم مرتين أسبوعياً. تم إحداث ارتفاع ضغط الدم الناجم عن نقص أكسيد النيتريك عن طريق التغذية القسرية الفموية بـ L-NAME (بجرعة 40 mg/kg/day في 0.5% CMC-Na؛ بحجم 10 mL/kg) لمدة 3 أسابيع. تم تحديد أهلية النموذج قبل التوزيع العشوائي على أساس أن يكون ضغط الدم الانقباضي ≥140 mmHg في قياسين متتاليين. وقد نجح هذا النموذج في إعادة إنتاج حالة ارتفاع ضغط الدم الناجم عن نقص أكسيد النيتريك، ولم يكن مخصصاً لارتفاع ضغط الدم عصبي المنشأ.
التجميع، والإعطاء، وجمع العينات
تم توزيع الجرذان على مجموعة ضابطة طبيعية ومجموعة نمذجة L-NAME. وبعد التأكد من أهلية النموذج، تم توزيع الجرذان المصابة بفرط ضغط الدم والمؤهلة على مجموعات: مركبة النموذج، أو SJBE بجرعة 100 mg/kg/day، أو 200 mg/kg/day، أو 400 mg/kg/day، أو مجموعة valsartan بجرعة 10 mg/kg/day. تم إعطاء جميع تركيبات التغذية القسرية مرة واحدة يوميًا بجرعة 10 mL/kg، وتلقت المجموعات الضابطة نفس الحجم من 0.5% CMC-Na. تكونت العينة النهائية التي خضعت للتحليل من ستة جرذان لكل مجموعة (بإجمالي 36 جرذًا). وتم تسجيل عدد الجرذان المسجلة أوليًا، والوفيات، والاستبعادات حسب المجموعة والسبب. استمرت التغذية القسرية اليومية لمدة 6 أسابيع بينما ظلت المجموعات المشتقة من النموذج خاضعة لبروتوكول L-NAME.
عند نقطة النهاية، تم تخدير الجرذان باستخدام بنتوباربيتال الصوديوم (50 mg/kg، عن طريق الحقن داخل الصفاق)، وتم التأكد من فقدان منعكس سحب الطرف. جُمع الدم (4–6 mL) من الأبهر البطني في أنابيب تحتوي على EDTA. تم قتل الجرذان عن طريق استنزاف الدم تحت تخدير عميق، ثم أُجري تروية عبر القلب بحوالي 200 mL من محلول ملحي 0.9% مبرد بالثلج. جرى طرد عينات الدم مركزياً عند 2,000 × g لمدة 15 min عند 4 °C، وخُزنت البلازما عند −80 °C. أُزيلت الأدمغة على الفور، وباستخدام أطلس دماغ الجرذ، جُهزت كتلة إكليلية تمتد تقريباً من −1.3 mm إلى −2.1 mm من منطقة البريغما (bregma)، وتم تشريح النوى المجاورة للبطينات (PVN) ثنائية الجانب بدقة مجهرية ضمن نطاق 0.3–0.6 mm جانبياً من الخط الناصف و7.4–8.2 mm بطنياً من سطح الجمجمة. جُمّد النسيج تجميداً سريعاً لإجراء تحليلات RNA والبروتين، أو طُمِر لتحضير قطاعات مجمدة بسمك 20 µm.
التوزيع العشوائي، وإخفاء التخصيص، والتعمية، ومعايير الاستبعاد
تم تقسيم الجرذان المصابة بفرط ضغط الدم والمؤهلة للدراسة إلى طبقات بناءً على وزن الجسم وضغط الدم الانقباضي الأساسي، ثم وُزعت باستخدام قائمة عشوائية كتلية تم إنشاؤها بواسطة الكمبيوتر بكتل مكونة من ستة. قام باحث لم يشارك في عملية إعطاء الجرعات أو تقييم النتائج بإنشاء التسلسل، وإعداد رموز المجموعات المتتابعة، وإخفاء قائمة التوزيع حتى استوفت جميع الحيوانات معايير الأهلية. وقد اعتُبر الحيوان هو الوحدة التجريبية للنهايات الطرفية المتعلقة بضغط الدم، والتحاليل الجزيئية والكيميائية الحيوية والنسيجية.
تم تمييز تركيبات التغذية القسرية (Gavage)، وأنابيب العينات، وحصص الأنسجة، والمقاطع، والصور، وأطباق المقايسة برموز حيوانية عشوائية مكونة من ثلاثة أرقام. وقد تم تعمية الباحثين الذين قاموا بقياسات ضغط الدم، وقياس الكثافة، واختبار ELISA، واكتساب الصور، وتحليل الصور عن توزيع المجموعات العلاجية. ولم يتم الكشف عن الرموز إلا بعد الانتهاء من فحوصات الجودة المحددة مسبقاً والتحليل الأولي. كما تم استبعاد الحيوانات فقط في حالات الوفاة غير المرتبطة بالعلاج، أو المرض الشديد أو الإصابة، أو فقدان وزن الجسم بنسبة >20%، أو فشل التغذية القسرية، أو فشل تحفيز النموذج، أو عدم كفاية آثار طوق الذيل بعد تكرار الإجراء، أو فقدان العينات، أو فشل المقايسة الموثق. وتم الإبلاغ عن جميع حالات الاستبعاد حسب المجموعة والسبب. ونظراً لعدم توفر حساب مسبق للقوة الإحصائية، فقد تم التعامل مع العدد n = 6/group كعينة ميكانيكية استكشافية.
قياس ضغط الدم باستخدام كمّ الذيل
تم قياس ضغط الدم باستخدام نظام غير باضع لقياس ضغط الذيل في غرفة هادئة بين الساعة 09:00 و12:00. تم تعويد الجرذان لمدة 5 أيام متتالية من خلال وضعها في أداة التثبيت لمدة 15 min/day. وفي كل يوم قياس، تم تدفئة الحيوانات عند 33 °C ± 1 °C لمدة 10 min، تلاها 5 min إضافية في أداة التثبيت. تم استبعاد أول خمس دورات من النفخ والتفريغ، وتم تسجيل 10–15 دورة إضافية. تُقبل الجلسة عندما يكون هناك خمس قراءات صالحة تقنيًا على الأقل بمعامل تباين ≤10%. تم حساب قيمة ضغط الدم على مستوى الحيوان كمتوسط للقراءات الصالحة. وعندما لا يتم استيفاء هذا المعيار، يتم إراحة الحيوان لمدة 10 min، وتُكرر مجموعة واحدة من الدورات. وإذا ظل المعيار غير مستوفًى، تُكرر الجلسة في اليوم التالي، وتُسجل الجلسة الأصلية كبيانات مفقودة بدلاً من إزالة القراءات الفردية بشكل انتقائي. وفرت قياسات ضغط الذيل تقديرات متقطعة لضغط الدم ولم توفر قياسات عن بُعد مستمرة.
مقايسة الممتز المنسر الساندويتشي (ELISA)
تمت معالجة السوائل الطافية لمزارع الخلايا، والسوائل الطافية لمتجانسات النواة المجاورة للبطينات (PVN)، والبلازما باستخدام أطقم مقايسة متوافقة مع المادة التحليلية والنوع: TNF-α للفأر، وIL-1β للفأر، وIL-6 للفأر، وTNF-α للجرذ، وIL-1β للجرذ، وAng-(1-7)، والنورإبينفرين. تم ترويق السوائل الطافية للخلايا عند 1,000 × g لمدة 10 دقائق عند 4 °C. تم تجنيس نسيج PVN بنسبة 1:9 (وزن/حجم) في محلول PBS مبرد على الثلج يحتوي على مثبطات البروتياز، ثم تم إجراء طرد مركزي عند 12,000 × g لمدة 15 دقيقة عند 4 °C. تم إذابة البلازما المجمدة مرة واحدة فقط على الثلج. تُرِكت الكواشف لتصل إلى درجة حرارة الغرفة لمدة 30 دقيقة. أُضيف حجم 100 µL من المعايير والعينات في مكررات تقنية وحُضنت لمدة 2 ساعة عند 37 °C، تلا ذلك خمس غسلات باستخدام 300 µL من محلول الغسل المنظم. بعد ذلك، أُضيف 100 µL من الأجسام المضادة للكشف المبيوتنة وحُضنت لمدة 1 ساعة عند 37 °C. غُسلت الأطباق خمس مرات، ثم أُضيف 100 µL من مرافق بيروكسيداز الفجل الحار وحُضنت لمدة 30 دقيقة عند 37 °C. بعد خطوة غسل أخرى، أُضيف 90 µL من ركيزة TMB، وتم تحميض الأطباق لمدة 15 دقيقة في الظلام. ثم أُضيف حجم 50 µL من محلول الإيقاف، وقِيست الامتصاصية عند 450 nm خلال 5 دقائق باستخدام قارئ الأطباق الدقيقة. حُسبت التركيزات باستخدام منحنى قياسي لوجستي رباعي المعلمات. قُبلت القياسات المكررة عندما كان معامل الاختلاف ≤15%؛ أما العينات التي وقعت خارج النطاق المعاير فقد خُففت وأُعيد تحليلها.
تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي
تم استخلاص الحمض النووي الريبوزي الكلي (Total RNA) من الخلايا أو أنسجة النواة جنيب البطينات (PVN) باستخدام كاشف TRIzol. وقُيمت نقاوة الـ RNA باستخدام نسبة A260/A280، واستُخدم 1 µg من الـ RNA لتخليق الـ cDNA باستخدام مزيج Evo M-MLV reverse-transcription premix. احتوى كل تفاعل qPCR بحجم 20 µL على 10 µL من 2× SYBR Green master mix، و0.4 µL من كل من البادئات الأمامية والعكسية بتركيز 10 µmol/L، و2 µL من الـ cDNA المخفف، و7.2 µL من الماء الخالي من النوكلياز. أُجريت التفاعلات في ثلاث مكررات تقنية باستخدام نظام كشف PCR في الوقت الحقيقي. وكانت ظروف الدورات الحرارية هي 95 °C لمدة 30 s، تلتها 40 دورة تتكون من 95 °C لمدة 5 s و60 °C لمدة 30 s. ثم تم إنشاء منحنى انصهار (melt curve) من 65 °C إلى 95 °C بزيادات قدرها 0.5 °C. كما تضمنت التجربة ضوابط خالية من القالب (no-template) وخالية من النسخ العكسي (no-reverse-transcription). ولم يتم قبول المقايسة إلا عند ملاحظة قمة انصهار واحدة وكفاءة منحنى قياسي تتراوح بين 90%–110%. وحُسب التعبير الجيني النسبي باستخدام طريقة 2⁻ΔΔCt مع اعتبار Gapdh الجين المرجعي. تظهر تسلسلات البادئات المستخدمة في الدراسة في الجدول 1.
لطخة ويسترن (Western blot)
تم استخلاص البروتين الكلي من الخلايا أو أنسجة النواة الحلمية البطنية (PVN) باستخدام محلول RIPA المنظم المبرد بالثلج والذي يحتوي على مثبطات البروتياز والفوسفاتاز. تم ترويق النواتج الليزية عند 12,000 × g لمدة 15 دقيقة عند 4 °C، وتم تحديد تركيز البروتين باستخدام مقايسة BCA. تم تحميل إجمالي 30 µg من البروتين في كل مسار على هلام SDS-polyacrylamide بتركيز 8%–12% تم اختياره وفقاً للوزن الجزيئي للبروتين المستهدف، ونُقل إلى غشاء PVDF بمسامية 0.45 µm عند 300 mA لمدة 90 دقيقة على الثلج. تم حجب الأغشية لمدة ساعة واحدة في درجة حرارة الغرفة باستخدام 5% ألبومين مصل بقري للبروتينات المفسفرة أو 5% حليب خالي الدسم للأهداف الأخرى. حُضنت الأجسام المضادة الأولية طوال الليل عند 4 °C بالتخفيفات المحددة في جدول المواد، بما في ذلك الجسم المضاد لـ CREB الكلي. غُسلت الأغشية ثلاث مرات لمدة 10 دقائق باستخدام TBST وحُضنت مع الجسم المضاد الثانوي المناسب المقترن ببيروكسيداز الفجل (1:5,000) لمدة ساعة واحدة في درجة حرارة الغرفة، متبوعاً بغسيل إضافي. تم الكشف عن الحزم عن طريق التألق الكيميائي المعزز باستخدام تعريضات غير مشبعة. وتم قياس كثافة الحزم باستخدام برنامج ImageJ. كما تم تطبيع البروتينات المفسفرة بالنسبة إلى البروتين الكلي المقابل، بينما تم تطبيع البروتينات المستهدفة الأخرى بالنسبة إلى GAPDH.
صبغ التألق المناعي
تم إعداد مقاطع تجميدية إكليلية (20 µm) عبر النواة جنيب البطينية (PVN) من مسافة تتراوح تقريبًا بين −1.3 إلى −2.1 mm بالنسبة لنقطة البريغما (bregma). تم اختيار ثلاثة مقاطع متطابقة تشريحيًا لكل جرذ على فترات تباعد قدرها 120 µm. تُرِكت المقاطع لتتوازن لمدة 20 min في درجة حرارة الغرفة، ثم غُسلت ثلاث مرات بمحلول PBS، وعولجت لمنع الارتباط غير النوعي (blocking) ولزيادة النفاذية باستخدام 0.3% Triton X-100 ومصل ماعز بتركيز 5% لمدة 1 h. حُضنت المقاطع مع الأجسام المضادة الأولية Iba-1 أو c-Fos طوال الليل عند 4 °C، ثم غُسلت، وحُضنت مع الجسم المضاد الثانوي الفلوري المناسب لمدة 1 h في درجة حرارة الغرفة وفي الظلام. صُبغت النوى صبغة تباينية باستخدام DAPI لمدة 10 min. تم التقاط صور ثنائية الجانب للنواة جنيب البطينية (PVN) بتكبير 200× باستخدام مجهر فلوري مقلوب، مع الحفاظ على إعدادات تعريض وكسب متماثلة لكل علامة. تم تطبيق حد عتبة (threshold) محدد مسبقًا في برنامج ImageJ على الصور المرمزة، وتم قياس المساحة الموجبة لـ Iba-1 أو النوى الموجبة لـ c-Fos. حُسب متوسط القياسات من المقاطع الثلاثة للحصول على قيمة واحدة على مستوى الحيوان.
السلامة والتخلص من النفايات
تم التعامل مع الميثانول والإيثانول والبارافورمالدهيد وDCFH-DA وكواشف الفصل الكهربائي والأنسجة الحيوانية وفقاً لإجراءات السلامة الكيميائية والحيوية المؤسسية. وقد تم التعامل مع المذيبات المتطايرة والبارافورمالدهيد داخل غطاء كيميائي معتمد، مع ارتداء معدات الوقاية الشخصية المناسبة. كما تم فصل نفايات المذيبات العضوية الخالية من الهالوجين والنفايات المحتوية على الفورمالدهيد، وتم تطهير النفايات البيولوجية، والتخلص من الأدوات الحادة وجثث الحيوانات عبر المسارات المؤسسية المعتمدة. وتم التأكد من فئات النفايات المحلية وإجراءات الطوارئ قبل الاستخدام.
التحليل الإحصائي
عُرِضت البيانات كمتوسط ± الانحراف المعياري وحُللت باستخدام برامج إحصائية وبرامج رسم بياني. اعتُبِر تحضير المزرعة المستقل أو الحيوان كوحدة تجريبية بيولوجية، وتم حساب متوسط الآبار التقنية أو الحقول أو القياسات المكررة داخل كل وحدة قبل الاستدلال الإحصائي. كما قُيمت افتراضات التوزيع وأنماط التباين قبل إجراء التحليلات البارامترية. وحُللت مجموعات البيانات النهائية متعددة المجموعات باستخدام تحليل التباين أحادي الاتجاه، متبوعاً بمقارنات توكي المصححة للتعددية. وعُرِض ضغط الدم الانقباضي الطولي وصفياً كمتوسط ± الانحراف المعياري، وحُللت نتائج ضغط الدم النهائية باستخدام تحليل التباين أحادي الاتجاه مع تصحيح توكي. وتم تسجيل قيم p المصححة، وفروق المتوسطات، وفواصل الثقة 95%. واعتُبِرت قيمة p ثنائية الجانب < 0.05 ذات دلالة إحصائية، كما تم تسجيل جميع الاستبعادات والقيم المفقودة.
النتائج
يُثبِط SJBE المُحدَّد كميًا بواسطة كروماتوغرافيا السائل عالي الأداء التهاب الخلايا الدبقية الصغيرة المُحفَّز بواسطة أنجيوتنسين الثاني
أنتج استخلاص الإيثانول بالارتجاع مسحوق SJBE بنسبة 25.5 ± 0.7٪ من المادة الأولية (الشكل 1A). وحدد التحليل الكروماتوجرافي السائل عالي الأداء (HPLC) تركيز الروتين والكويرسيتين عند 276.1 مغ/غ ± 9.2 مغ/غ و12.5 مغ/غ ± 0.9 مغ/غ على التوالي (الشكل 1B)، مما وفر توصيفاً كمياً للعلامات الجزيئية لتحضير SJBE المستخدم في جميع التجارب البيولوجية.
أظهر SJBE عدم وجود تأثير قابل للكشف على قابلية بقاء خلايا BV-2 عند تركيزات تصل إلى 200 µg/mL، في حين لوحظ انخفاض كبير في القابلية على البقاء عند تركيز 400 µg/mL (الشكل 1C). استنادًا إلى هذه النتائج، تم اختيار تركيز 100 µg/mL لإجراء التجارب الميكانيكية اللاحقة. زاد Ang II بشكل ملحوظ من إفراز TNF-α وIL-1β من خلايا BV-2، في حين قلل SJBE من إفراز كلا السيتوكينات الالتهابية عبر المدى غير السام سميًا من التركيزات المختبرة (الشكل 1D،هـ)، مما يشير إلى تأثير مضاد للالتهاب يعتمد على التركيز تحت تأثير تحفيز Ang II.
يُرتبط SJBE بعلامات أعلى لـ ACE2/MasR وبإشارات أقل لـ NF-κB والتوتر التأكسدي
قللت تحفيزات أنجيوتنسين الثاني من التعبير عن ACE2 وMasR على مستويات البروتين وmRNA على حد سواء، ورافقتها زيادة في فسفرة NF-κB p65. وقد عكست معالجة SJBE هذه التغيرات، حيث زادت من التعبير عن ACE2 وMasR بينما قللت من فسفرة p65 (الشكل 2A–E).
تماشيًا مع هذه التغيرات الجزيئية، قلّل مستخلص SJBE من تراكيز TNF-α من 135 pg/mL ± 12 pg/mL إلى 55 pg/mL ± 6 pg/mL، ومن تراكيز IL-1β من 102 pg/mL ± 10 pg/mL إلى 42 pg/mL ± 5 pg/mL في المحاليل الفوقية للزراعة المحفزة بـ Ang II. وقد أدى إضافة مثبط ACE2 MLN-4760 إلى تقليل هذه التأثيرات بشكل كبير، مع ارتفاع تراكيز TNF-α وIL-1β إلى 125 pg/mL ± 11 pg/mL و 95 pg/mL ± 9 pg/mL على التوالي. وكرر علاج الروتين جزءًا من الاستجابة المضادة للالتهاب التي لوحظت مع المستخلص الكامل (الشكل 2F).
قلل SJBE أيضًا بشكل ملحوظ من إضاءة DCFH-DA داخل الخلايا بعد تحفيز Ang II، مما يشير إلى انخفاض تراكم أنواع الأكسجين التفاعلية داخل الخلايا. وقد تضاءل هذا الانخفاض بفعل MLN-4760 (الشكل 2G،H). معًا، تشير هذه النتائج إلى أن التأثيرات المضادة للالتهاب والمضادة للأكسدة لـ SJBE في خلايا BV-2 المحفزة بـ Ang II ترافقها استعادة إشارات ACE2/MasR، وهي حساسة للتثبيط الدوائي لـ ACE2.
تقيّد SJBE انتقال الالتهاب من الخلايا الدبقية الصغيرة إلى الخلايا العصبية الوطائية
لدراسة ما إذا كانت التأثيرات المضادة للالتهابات لمستخلص SJBE تؤثر على الاتصال بين الخلايا الدبقية الصغيرة والخلايا العصبية، تم زراعة خلايا BV-2 وخلايا عصبية وسطائية mHypoA-2/10 في نظام ثروال غير تلامسي. أدى التحفيز بـ Ang II إلى زيادة تركيزات TNF-α وIL-1β في نظام الزراعة المشترك، في المقابل قلل SJBE من مستوى TNF-α من 150 ± 15 بيكومتر/مل إلى 65 ± 8 بيكومتر/مل ومن IL-1β من 110 ± 12 بيكومتر/مل إلى 48 ± 6 بيكومتر/مل (الشكل 3A). كما قلل Ang II من التعبير عن Ace2 وMas1، وكلاهما عاد نحو المستويات الضابطة بعد العلاج بـ SJBE (الشكل 3B).
تم ملاحظة تغيرات مماثلة في الخلايا العصبية للوطاء المزروعة في الحجرة السفلية. أدى التعرض للبيئة المشتركة المحفزة بـ Ang II إلى زيادة التعبير عن c-Fos وCOX-2، وتغير التعبير عن Avp وOxtr، في حين خفف SJBE من هذه الاستجابات (الشكل 3C–G). وقد تم إضعاف النمط الوقائي بواسطة MLN-4760، مما يعزز الربط بين نشاط ACE2 والآثار المرصودة في نظام الزراعة المشتركة.
تُظهر هذه النتائج أن مستخلص SJBE يقمع البيئة الالتهابية الناتجة عن التحفيز بـ Ang II ويصاحبه تقليل في تنشيط الاستجابات العصبية ما تحت المهاد الواقعة في النموذج العابر.
يُرتبط SJBE بإشارات Ang-(1-7) وانخفاض إصابة الخلايا العصبية في ظل التوتر الناتج عن ارتفاع الصوديوم وAng II معًا
قللت التعرض لـ Ang II من تركيزات Ang-(1-7) في المخلوط الخارق للزراعة المشتركة وزيادة نسبة الفوسفو-CREB/CREB العصبية. وقد زاد العلاج بـ SJBE من Ang-(1-7) وقلل من فسفرة CREB نحو مستويات المجموعة الضابطة (الشكل 4A–C)، بما يتماشى مع استعادة نمط الإشارات المرتبط بمسار ACE2/Ang-(1-7)/MasR الذي لوحظ في التجارب السابقة.
عند التحفيز المشترك بـ 30 مليمول/لتر من كلوريد الصوديوم وثنائي ببتيد أنجيوتنسين II، أظهرت الخلايا العصبية في الوطاء زيادة في التعبير عن أفيبيتين (Avp) ونسبة أعلى من الخلايا الإيجابية لاختبار TUNEL. وقد قلل مستخلص SJBE بشكل ملحوظ من هاتين الاستجابتين (الشكل 4D–F)، مما يشير إلى انخفاض الإجهاد العصبي والإصابة تحت التحدي المشترك. بالنسبة لتحليل TUNEL، يمثل كل قيمة ثقافة مشتركة تم إعدادها بشكل مستقل، مع أخذ متوسط ثلاث حقول مجهرية داخل كل نسخة بيولوجية قبل التحليل الإحصائي (n = 5 لكل مجموعة).
يقلل SJBE ضغط الدم المقاس بالكمّاشة الذيلية ويرتبط بزيادة علامات ACE2/Ang-(1-7)/MasR في النواة فوق البصرية لدى الجرذان المعاملة بـ L-NAME
أدى الت administration اليومي لـ L-NAME إلى زيادة تدريجية في ضغط الدم الانقباضي أثناء استحداث النموذج. وبعد إثبات حالة ارتفاع ضغط الدم، قلل العلاج بـ SJBE من ضغط الدم المقاس أسبوعيًا باستخدام قنية الذيل خلال فترة التدخل التي استمرت 6 أسابيع، حيث لُوحظ الاستجابة الأشد وضوحًا في مجموعة الجرعة العالية (الشكل 5A).
عند نقطة نهاية الدراسة، كان الضغط الانقباضي 165 ± 8 مم زئبق في مجموعة النموذج المعالجة بـ L-NAME مقارنة بـ 115 ± 5 مم زئبق في جرذان المجموعة الضابطة. قلل العلاج بجرعة عالية من SJBE من الضغط الانقباضي إلى 130 ± 6 مم زئبق. وانخفض الضغط الانبساطي من 110 ± 6 مم زئبق إلى 85 ± 4 مم زئبق، في حين انخفض متوسط الضغط الشرياني من 128 ± 7 مم زئبق إلى 100 ± 5 مم زئبق بعد العلاج بجرعة عالية من SJBE (جميعها بقيم p المعدلة < 0.0001 مقارنةً بمجموعة النموذج؛ الشكل 5B). تُظهر هذه النتائج استجابة مضادة لارتفاع الضغط مستمرة تجاه SJBE خلال فترة التدخل.
كشف تحليل نسيج النواة فوق البصرية عن تغيرات جزيئية متوازية. قلل علاج L-NAME من تعبير بروتينات ACE2 وMasR وكذلك من تراكيز Ang-(1-7)، في حين أعاد SJBE استعادة كل من العلامات الثلاثة بنمط مستجيب للجرعة. في مجموعة الجرعة العالية، ازداد التعبير النسبي لـ ACE2 من 0.40 ± 0.07 إلى 1.50 ± 0.18 ضعفًا، وازداد MasR من 0.45 ± 0.08 إلى 1.35 ± 0.16 ضعفًا، وازداد Ang-(1-7) من 9 بيكومتر/ملغ ± 2 بيكومتر/ملغ إلى 32 بيكومتر/ملغ ± 5 بيكومتر/ملغ بروتينًا مقارنةً بمجموعة النموذج (الشكل 5C–E). وبالتالي، رافق التأثير المخفض لضغط الدم الناتج عن SJBE استعادة الملامح الجزيئية المرتبطة بمسار ACE2/Ang-(1-7)/MasR داخل النواة فوق البصرية.
يُرتبط SJBE بعلامات أقل لتفعيل الالتهاب في النواة فوق البصرية وانبعاث الجهاز الودي الجهازي
رافق ارتفاع ضغط الدم الناتج عن L-NAME تنشيط التهابي ملحوظ داخل النواة فوق البصرية. ارتفعت مستويات الرنا المرسال لكل من Tnf وIl1b في جرذان النموذج، في حين قلّل عيار SJBE العالي التعبير عن Tnf من 4.5 ± 0.5 إلى 1.8 ± 0.2 ضعف، وعن Il1b من 3.8 ± 0.4 إلى 1.6 ± 0.18 ضعف (الشكل 6A).
أظهر تحليل التألق المناعي تغيرات خلوية متناسقة. زاد تلوين Iba-1، الدال على تنشيط الخلايا الدبقية الصغيرة، في النواة فوق البصرية لفئران المعالجة بـ L-NAME وانخفض بعد إعطاء SJBE. وأظهر تلوين c-Fos نمطاً مشابهاً، مع تنشيط عصبي أقل بعد العلاج بـ SJBE مقارنةً بمجموعة النموذج غير المعالجة (الشكل 6B–D).
وقد صاحبت هذه التغيرات الالتهابية المركزية تحسينات في العلامات الالتهابية والودية الدوارة. ارتفعت تركيزات البلازما من TNF-α وIL-1β في جرذان النموذج وانخفضت بشكل كبير بعد العلاج بـ SJBE. في مجموعة الجرعة العالية، انخفض TNF-α من 45 pg/mL ± 6 pg/mL إلى 20 pg/mL ± 3 pg/mL، وانخفض IL-1β من 35 pg/mL ± 5 pg/mL إلى 15 pg/mL ± 3 pg/mL (الشكل 6E). وانخفض النورإبينفرين في البلازما بالمثل من 400 pg/mL ± 45 pg/mL إلى 180 pg/mL ± 25 pg/mL (الشكل 6F).
معاً، تُظهر هذه النتائج في الجسم الحي أن علاج SJBE يقلل من ضغط الدم لدى الجرذان المعالجة بـ L-NAME بالتوازي مع استعادة مؤشرات ACE2/Ang-(1-7)/MasR المرتبطة بالنواة فوق البصرية، وتقليل التنشيط الالتهابي في النواة فوق البصرية، وانخفاض السيتوكينات الالتهابية والنورإبينفرين الدوّارة.
توفر البيانات:
تُقدَّم البيانات العددية المصدرية الكامنة وراء الأشكال والنتائج الإحصائية المرتبطة بها في الملف التكميلي 1.
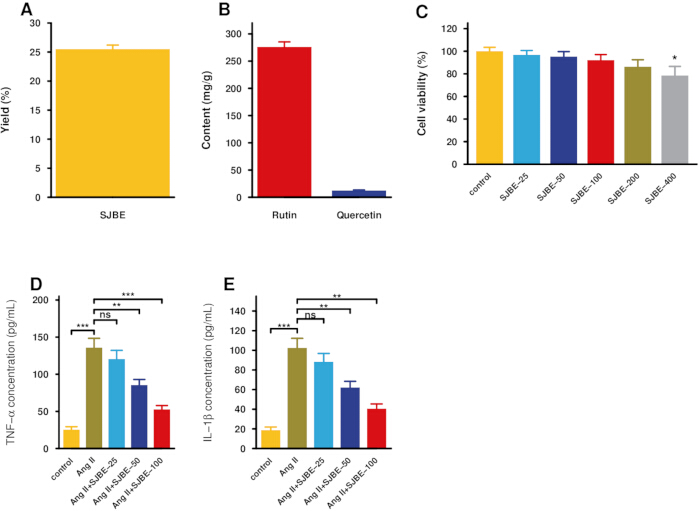
الشكل 1: التكميم المستهدف بواسطة كروماتوغرافيا السائل عالي الأداء والتجارب الأولية على خلايا BV-2. (A) العائد المستخلص. (B) محتوى الروتين والكويرسيتين في مستخلص SJBE المُكمَّن بواسطة كروماتوغرافيا السائل عالي الأداء المستهدفة. (C) قابلية بقاء خلايا BV-2 بعد التعرض لمدة 24 ساعة لمستخلص SJBE. (D,E) مستويات عامل نخر الورم-α (TNF-α) والإنترلوكين-1β (IL-1β) في المحاليل الفوقية لخلايا BV-2 المحفزة بـ Ang II. تمثل البيانات المتوسط ± الانحراف المعياري؛ n = 3 تجارب مستقلة للوحات الكمية المتاحة. تم استخدام تحليل التباين الأحادي الاتجاه مع مقارنات تم تعديلها وفقًا لتكييف تيكي. الاختصار: ns، غير دال إحصائيًا؛ *p < 0.05، **p < 0.01، *** p < 0.001، **** p < 0.0001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
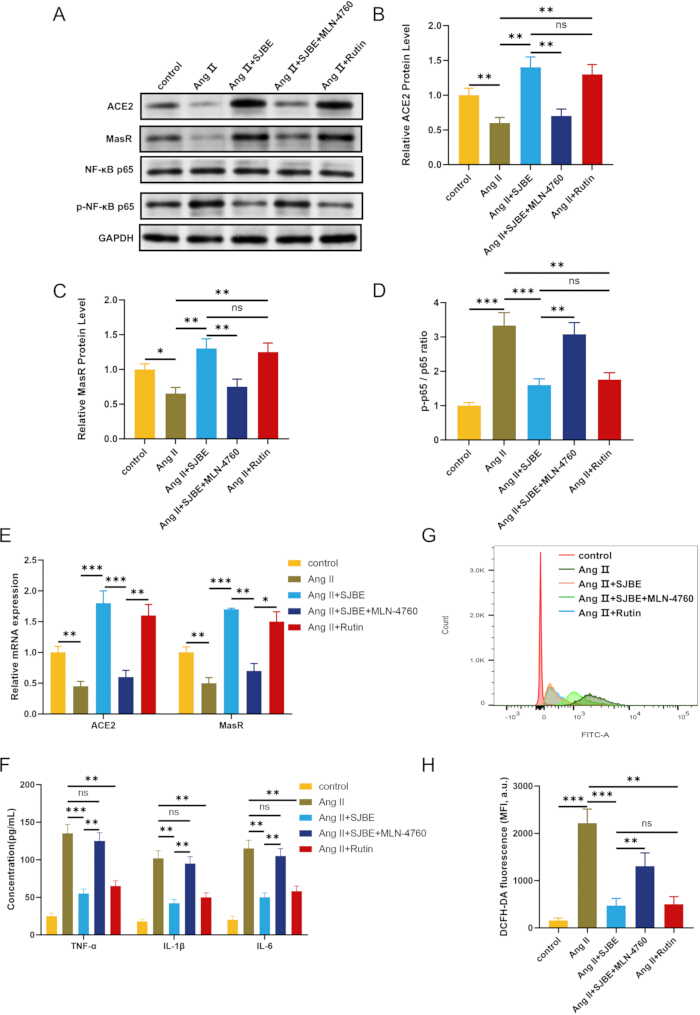
الشكل 2: يرتبط SJBE بعلامات أعلى لـ ACE2/MasR وانخفاض إشارات NF-κB والتوتر التأكسدي في خلايا BV-2. (A–D) مناعيّات البروتينات ACE2، MasR، p65 الفوسفوري، وp65 الكلي وكميتها. (E) mRNA الخاص بـ Ace2 وMas1. (F) TNF-α، IL-1β، وIL-6. (G,H) مخرجات تدفق السيتومتري لـ ROS وكمية الفلورة. البيانات معبّرة عن المتوسط ± الانحراف المعياري؛ n = 3 تجارب مستقلة. تم استخدام تحليل التباين الأحادي الاتجاه مع مقارنات تم تعديلها باستخدام طريقة تكي. ns، غير دال؛ *p < 0.05، **p < 0.01، ***p < 0.001، ****p < 0.0001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
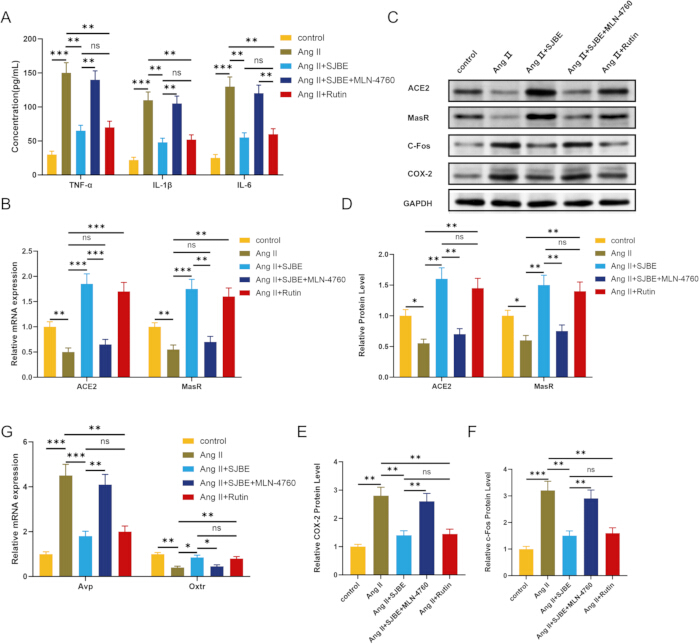
الشكل 3: يحدّ مقترب SJBE من الإشارات الالتهابية في نموذج زراعة مزدوجة تعتمد على عوامل قابلة للذوبان بين خلايا BV-2/mHypoA-2/10. (A) السيتوكينات في الماحول الخارق للزراعة المزدوجة. (B) الحمض الريبي النووي المرسال لـ Ace2 وMas1. (C–F) نتائج المناعة بالتحريض (الإمبرينت) والقياس الكمي لـ ACE2، MasR، c-Fos، وCOX-2. (G) التعبير عن Avp وOxtr في خلايا عصبية بالحجرة السفلية. البيانات تمثل المتوسط ± الانحراف المعياري؛ n = 3 تجارب مستقلة. تم استخدام تحليل التباين الأحادي الاتجاه مع مقارنات تم تعديلها باستخدام طريقة توكي. ns، غير دال إحصائيًا؛ *p < 0.05، **p < 0.01، ***p <0.001، ****p < 0.0001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
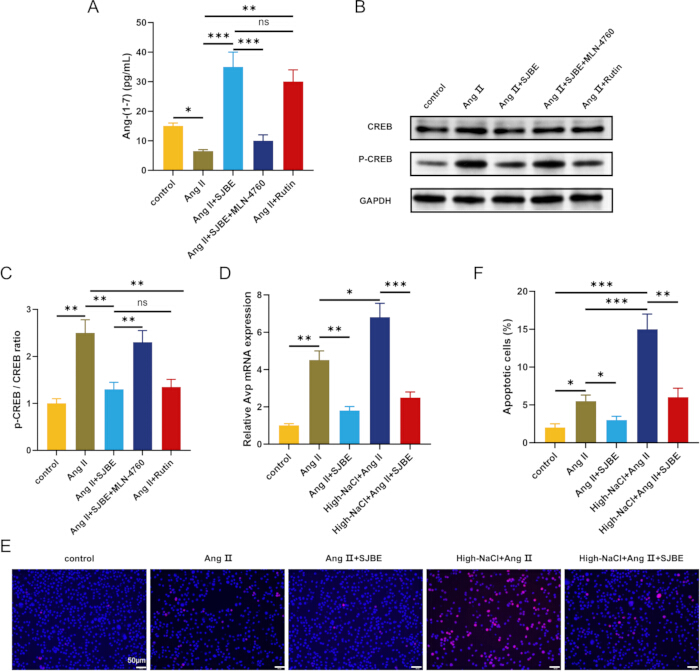
الشكل 4: يرتبط SJBE بإشارات Ang-(1-7) وانخفاض الإصابة العصبية المرتبطة بالإجهاد. (A) Ang-(1-7) في وسط الترسب المشترك. (B,C) CREB المفسفر وCREB الكلي في الخلايا العصبية بالحجرة السفلية. (D) Avp تحت ظروف الإجهاد المزدوجة NaCl/Ang II. (E,F) صور تمثيلية لفحص TUNEL والكمية؛ شريط المقياس، 50 µm. تُعرض البيانات كمتوسط ± الانحراف المعياري؛ n = 3 تجارب مستقلة للوحات A وC وD؛ n = 5 تحضيرات مستقلة للترسب المشترك للوحة F، مع متوسط ثلاث حقول لكل تحضير. تم استخدام تحليل التباين الأحادي الاتجاه مع مقارنات تم تعديلها باستخدام طريقة تكي. ns، غير دال إحصائيًا؛ *p < 0.05، **p < 0.01، ***p < 0.001، ****p < 0.0001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
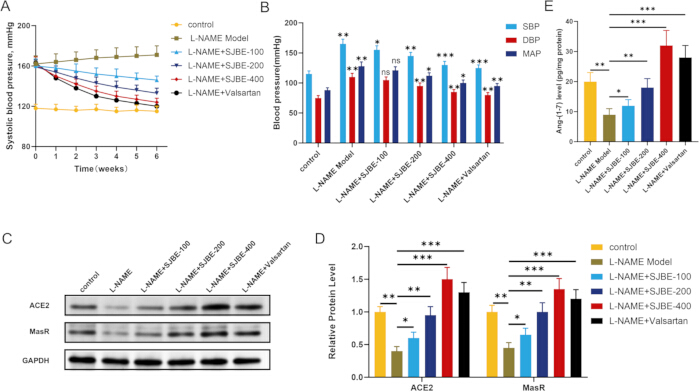
الشكل 5: يقلل العلاج بمستخلص SJBE من ضغط الدم المقاس بالكمّاشة الذيلية ويرتبط بزيادة مؤشرات ACE2/Ang-(1-7)/MasR في نواة الفص المتوسطة للدماغ (PVN) لدى الجرذان المعالجة بـ L-NAME. (A) ضغط الدم الانقباضي على مدار الزمن. (B) ضغط الدم الانقباضي، والانبساطي، ومتوسط ضغط الشريان في النهاية. (C,D) نتائج التحليل المناعي لبروتيني ACE2 وMasR وكميتها في أنسجة النواة الفص المتوسطة (PVN). (E) مستوى Ang-(1-7) في مستحلبات النواة الفص المتوسطة (PVN). البيانات معبّرة عن المتوسط ± الانحراف المعياري؛ n = 6 جرذان/مجموعة. يُعرض ضغط الدم الانقباضي على مدار الزمن بشكل وصفي؛ بينما استُخدم تحليل التباين الأحادي الاتجاه مع مقارنات تم تعديلها حسب تكي (Tukey) للنتائج النهائية. ns: غير دال إحصائيًا؛ *p < 0.05، **p < 0.01، ***p < 0.001، ****p < 0.0001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
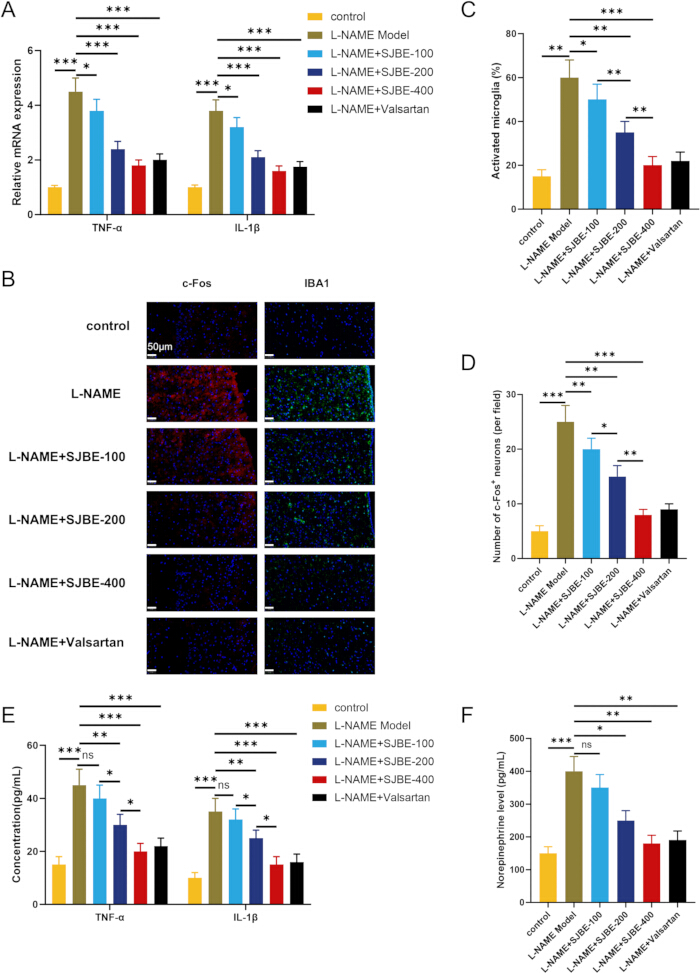
الشكل 6: يرتبط SJBE بانخفاض مؤشرات التنشيط الالتهابي في النواة فوق البصرية وانخفاض مؤشرات النشاط الودي الجهازي لدى الجرذان المعالجة بـ L-NAME. (A) مستويات mRNA لكل من Tnf وIl1b في نسيج النواة فوق البصرية. (B–D) التألق المناعي لكل من Iba-1 وc-Fos والكمية؛ شرائط المقياس، 50 µm. (E) مستويات TNF-α وIL-1β في البلازما. (F) نورإبينفرين البلازما. تمثل البيانات المتوسط ± الانحراف المعياري؛ n = 6 جرذان/مجموعة. تم استخدام تحليل التباين الأحادي الاتجاه مع مقارنات تم تعديلها باستخدام طريقة توكي. *p < 0.05، **p < 0.01، ***p < 0.001، ****p < 0.0001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| جين | البادئ الأمامي (5'-3') | المرنا العكسي (5'-3') |
| جَابده | CACCCACTCCTCCACCTTTGAC | GTCCACCACCCTGTTGCTGTAG |
| Tnf | CCTGCTGCACTTTGGAGTGA | جـ-سي-تي-تي-جـ-أ-جي-جي-تي-تي-جيـ-سي-تي-أ-كـ-أ-كـ-أ |
| Il1b | CAGTGAGGAGAATGACCTGTTC | CGAGATGCTGCTGTGAGATT |
| Ace2 | تسياتّغغتسيتّغغتسياتّغ | AGACCATCCACCTCCACTTCTC |
| Mas1 | تسيكاكاتكأأاتكأأأأأأ | AAGCCACCCACATTCAGGC |
| أفب | TCGCCATGATGCTCAACACTACGC | أكاكتجتستكاجكتستكاطجتك |
| Oxtr | GTGTCGAGTTGGACCTCGGG | CCAGGAACAGAATGAGGCACAG |
الجدول 1: تسلسلات البدئات المستخدمة في الدراسة.
الملف التكميلي 1: البيانات العددية المصدرية التي تستند إليها الأشكال والنتائج الإحصائية المرتبطة. يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
تربط هذه الدراسة بين مستخلص براعم S. japonicum المكمّم بواسطة تقنية HPLC وبين انخفاض إشارات الالتهاب في نماذج الزراعة المشتركة للخلايا الدبقية الصغيرة والعوامل الذائبة، وبين انخفاض ضغط الدم في قياسات طوق الذيل لدى الجرذان المعالجة بـ L-NAME. وعبر الأنظمة التجريبية، تزامن العلاج بـ SJBE مع ارتفاع مؤشرات ACE2/Ang-(1-7)/MasR، وانخفاض تنشيط NF-κB والإجهاد التأكسدي، وانخفاض مؤشرات التنشيط الالتهابي في النواة جنيبة البطينية (PVN). تدعم هذه الملاحظات المتوافقة فرضية مناعية عصبية، ولكنها لا تثبت أن المسار المركزي هو الذي يتوسط التأثير الخافض لضغط الدم.
تتوافق هذه النتائج مع التقارير التي تشير إلى أن مكونات زهرة S. japonicum والروتين يقللان من إشارات الالتهاب والالتهاب العصبي8,9,22، ومع الأدلة التي تثبت أن الكيرسيتين ينظم النغمة الالتهابية القلبية الوعائية وإشارات الأكسدة والاختزال في الخلايا الدبقية الصغيرة12,13. وتوسع الدراسة الحالية هذه الملاحظات لتشمل نماذج المناعة العصبية في منطقة تحت المهاد باستخدام مستخلص نباتي كامل. ونظراً لأن MLN-4760 أضعف الاستجابة الوقائية in vitro فقط، فإن التفسير الأنسب لـ ACE2 هو أنه مساهم وظيفي في الاستجابة الخلوية المضادة للالتهابات، وليس الوسيط الرئيسي المؤكد لتأثير ضغط الدم in vivo.
تضع نتائج النواة جارات البطينية (PVN) الملاحظات الخلوية ضمن منطقة التحكم في القلب والأوعية الدموية. وتظهر الدراسات السابقة أن الخلايا الدبقية الصغيرة والسيتوكينات الالتهابية تساهم في ارتفاع ضغط الدم العصبي والاستثارة الودية23,24. ويمكن لإشارات Ang-(1-7) داخل الـ PVN أن تنظم التدفق الودي، بينما يمكن لـ Ang II أن يحفز الإجهاد التأكسدي للخلايا الدبقية الصغيرة المعتمد على AT1/TLR420,21. وبناءً على ذلك، فإن الانخفاضات في Iba-1 و c-Fos والسيتوكينات الالتهابية والنورإبينفرين في البلازما بعد العلاج بـ SJBE تتفق مع انخفاض التنشيط الالتهابي في الـ PVN، إلا أن البيانات لا تحدد ما إذا كانت هذه التغييرات هي التي تسببت في خفض ضغط الدم أم أنها جاءت نتيجة لتحسن جهازي.
توفر نماذج Ang II وL-NAME سياقات إجهاد متكاملة بدلاً من آليات مرضية متطابقة؛ حيث يحفز تحفيز Ang II التهاب الخلايا الدبقية الصغيرة المدفوع بنظام الرينين-أنجيوتنسين، بينما يمثل نموذج L-NAME فرط ضغط الدم الناتج عن نقص أكسيد النيتريك مع خلل في الوظائف الوعائية وإجهاد تأكسدي25,26. كما تشير نماذج أخرى إلى دور تنشيط الخلايا الدبقية الصغيرة في النواة جنيبة البطينات (PVN) في التنظيم السمبثاوي14,27، إلا أن دراسة L-NAME الحالية ليست محددة لفرط ضغط الدم العصبي المدفوع بـ PVN. أما حالة الزراعة المشتركة عالية الصوديوم فقد كانت بمثابة تحدٍ لإجهاد عصبي in vitro بدون وجود ضابط متساوي التوتر، ولا ينبغي تفسيرها على أنها نموذج لفرط ضغط الدم الملحى in vivo.
لضمان إمكانية إعادة تطبيق التجربة، تتمثل الخطوات الأكثر أهمية في توثيق المصدر النباتي، واتساق عمليات الاستخلاص والتخزين، وتوحيد كثافة الخلايا وتوقيت المعالجة، والتعيين الصحيح لمقصورات Transwell، وتعويد وتدفئة طوق الذيل، وأخذ عينات دقيقة من النواة جنبي البطينات (PVN)، والتقدير الكمي للنتائج النهائية بطريقة تعمية. ويجب أن تؤدي العوائد المتغيرة للاستخلاص إلى مراجعة رطوبة المواد، ونسبة المذيب، وظروف الارتجاع، والترشيح، والتجفيف بالتجميد؛ كما يجب أن تؤدي تحولات زمن الاستبقاء في تقنية HPLC إلى مراجعة تحضير المعايير، والطور المتحرك، ومعدل التدفق، ودرجة الحرارة، ومعادلة العمود، وملاءمة النظام. أما النتائج غير المتسقة في الزراعة المشتركة أو طوق الذيل، فينبغي معالجتها عبر فحص سلامة الإدراجات وموضع المعالجة أو بتكرار عملية التعويد الموحدة، بدلاً من الاستبعاد الانتقائي للقياسات. وتعد البصمة الكروماتوغرافية أو LC-MS/MS، وتصاميم الزراعة المشتركة الأولية أو الانتقائية للخلايا، والقياس عن بُعد، والحركية الدوائية في الدماغ/البلازما، وتجارب فقدان الوظيفة لـ ACE2/MasR المركزية، بدائل مناسبة للأسئلة التي تتجاوز نطاق هذا البروتوكول. وتوضح الأعمال الناشئة والمتداخلة التخصصات حول إعادة تشكيل البيئة الدقيقة للعصبونات وتكامل التصوير والذكاء الاصطناعي اتجاهات منهجية أوسع لاستقصاء الأنظمة البيولوجية المعقدة28,29.
هناك عدة قيود تحدد نطاق التطبيق؛ حيث قدم MLN-4760 أدلة وظيفية in vitro فقط، ولم يتم إجراء أي قياس لحصار ACE2/MasR أو قياس التعرض في البلازما أو الدماغ أو النواة جنيب البطينية (PVN) in vivo. وبناءً على ذلك، فإن تركيز 100 µg/mL يعد تركيز عمل in vitro غير سام للخلايا وليس تعريضاً مكافئاً لظروف in vivo. كما أن تصميم Transwell لا يمكنه إثبات التأثير المحدد على الخلايا الدبقية الصغيرة، كما أن صغر حجم مجموعة الحيوانات وعدم تحديد قوتها الإحصائية مسبقاً يحد من الدقة. وتعتبر قياسات كفة الذيل متقطعة وحساسة لقيود التثبيت. وأخيراً، فإن التحديد الكمي المستهدف للروتين/الكيرسيتين لا يضع بصمة كيميائية، أو تحققاً تحليلياً كاملاً، أو تحديداً للمكونات، أو اتساقاً بين الدفعات المستقلة. وضمن هذه الحدود، يدعم البروتوكول صياغة الفرضيات المتعلقة بـ SJBE، وإشارات الالتهاب العصبي، وتنظيم ضغط الدم، بدلاً من تقديم ادعاء سببي أو ترجمي نهائي.
الإفصاحات
يصرح المؤلفون بعدم وجود تضارب في المصالح.
شكر وتقدير
يقر المؤلفون بالدعم المؤسسي والفني المقدم من المختبرات المشاركة.
التمويل:
تم دعم هذا العمل من قبل المؤسسة الوطنية للعلوم الطبيعية في الصين (رقم 82600861)؛ ومشروع الشباب ضمن برنامج الأبحاث الأساسية في مقاطعة شانشي (الأرقام 202203021212491، 202303021222205)؛ والمشروع العام لبرنامج الأبحاث الأساسية في مقاطعة شانشي (رقم 202203021221210)؛ ومشروع بدء أبحاث الدكتوراه بجامعة شانشي داتونغ (رقم 2018-B-36).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 0.4 µm أدوات إدراج ترانسويل (Transwell inserts) | شركة كورنينج (Corning Incorporated) | 3413 | غشاء بولي كربونات مدرج في طبق 24 بئراً للزراعة المشتركة غير المتلامسة لخلايا BV-2/mHypoA-2/10 |
| جسم مضاد لـ ACE2 | تكنولوجيا إشارات الخلايا | 92485; RRID: AB_3741093 | ACE2 (E5O6J) rabbit mAb؛ WB 1:1,000؛ IHC/IF 1:100–1:200 |
| Alexa Fluor 488 المضاد لـ IgG الأرنبي | تكنولوجيا إشارات الخلايا | 4412؛ RRID: AB_1904025 | الأجسام المضادة الثانوية للتألق المناعي؛ 1:500 |
| Alexa Fluor 594 المضاد لـ IgG الأرنب | تكنولوجيا إشارات الخلايا | 8889؛ RRID: AB_2716249 | جسم مضاد ثانوي للتألق المناعي؛ 1:500 |
| أنجيوتنسين II | Sigma-Aldrich | A9525 | ببتيد Ang II الاصطناعي؛ تحفيز الخلايا الدبقية الصغيرة |
| طقم مقايسة أنجيوتنسين-(1-7) | Cloud-Clone Corp. | CES085Mi | تقدير كمية Ang-(1-7) |
| طقم مقايسة بروتين BCA | Beyotime Biotechnology | P0012 | تقدير كمية البروتين |
| خلايا BV-2 | Procell Life Science & شركة تكنولوجي المحدودة | CL-0493; RRID: CVCL_0182 | خط خلايا ميكروغلية فأرية؛ الممرات 3–20 |
| عمود الكروماتوغرافيا السائلة عالية الأداء C18 | شركة Shimadzu Corporation | Shim-pack GIST C18؛ رقم القطعة 227-30017-08 | 250 × ٤.٦ مم، 5 µmميثانول–ماء (65:35، حجم/حجم)، 1.0 مل/دقيقة، 35 °C |
| كاشف CCK-8 | Beyotime Biotechnology | C0038 | اختبار حيوية الخلايا |
| جسم مضاد لـ c-Fos | تكنولوجيا تأشير الخلايا | 2250؛ RRID: AB_2247211 | الأجسام المضادة أحادية النسيلة لـ c-Fos (9F6) من الأرنب؛ لطخة ويسترن 1:1,000؛ التألق المناعي 1:200 |
| جسم مضاد لـ COX-2 | تكنولوجيا إشارات الخلايا | 12282؛ RRID: AB_2571729 | الأجسام المضادة أحادية النسيلة (mAb) للأرنب ضد COX-2 (D5H5)؛ تحليل لطخة ويسترن (WB) بنسبة 1:1,000؛ الكيمياء النسيجية المناعية/الفلورة المناعية (IHC/IF) بنسبة 1:200 |
| مسبار DCFH-DA | Beyotime Biotechnology | S0033S | كشف أنواع الأكسجين التفاعلية (ROS) باستخدام قياس التدفق الخلوي |
| وسط ديلเมثيل أمينو أسيد (DMEM)، جلوكوز مرتفع | Gibco/Thermo Fisher Scientific | 11965092 | وسط زراعة الخلايا |
| طقم مزيج النسخ العكسي Evo M-MLV | التكنولوجيا الحيوية الدقيقة | AG11706 | تخليق الحمض النووي المتمم (cDNA) من أجل تفاعل البوليميراز المتسلسل الكمي (qPCR) |
| مصل جنين البقر | Gibco/Thermo Fisher Scientific | 10099141 | مكمل استزراع الخلايا |
| مقياس التدفق الخلوي | BD Biosciences | BD Accuri C6 Plus | الاستحواذ على تألق أنواع الأكسجين التفاعلية (ROS) |
| المجهر الفلوري | أوليمبوس/إيفيدنت ساينتيفيك (Olympus/Evident Scientific) | IX73 | مجهر فلوري مقلوب لتصوير TUNEL والنواة البطنية أمام hypothalamus (PVN) |
| جسم مضاد لـ GAPDH | تكنولوجيا إشارات الخلايا | 5174؛ RRID: AB_10622025 | جسم مضاد أحادي النسيلة للأرنب GAPDH (D16H11)؛ تحليل لطخة ويسترن 1:1,000–1:5,000 |
| مصل الماعز | بيويتايم للتكنولوجيا الحيوية (Beyotime Biotechnology) | C0265 | كاشف حجب التألق المناعي |
| نظام الكروماتوغرافيا السائلة عالية الأداء (HPLC) | شركة Shimadzu، كيوتو، اليابان | Prominence LC-20A | اختبار مراقبة جودة مستهدف للروتين/الكيرسيتين |
| جسم مضاد لـ IgG الفأري مرتبط بـ HRP | تكنولوجيا إشارات الخلايا | 7076؛ RRID: AB_330924 | الأجسام المضادة الثانوية لطريقة لطخة ويسترن؛ 1:3,000–1:5,000 |
| جسم مضاد لـ IgG الأرنب مرتبط ببيروكسيداز الفجل (HRP) | تكنولوجيا إشارات الخلايا | 7074; RRID: AB_2099233 | الأجسام المضادة الثانوية لبصمة ويسترن (Western blot)؛ 1:3,000–1:5,000 |
| الأجسام المضادة لـ Iba-1/AIF-1 | تكنولوجيا إشارات الخلايا | 17198؛ RRID: AB_2820254 | جسم مضاد أحادي النسيلة mAb من الأرنب لـ Iba-1/AIF-1 (E4O4W)؛ لطخة ويسترن (WB) بنسبة 1:1,000؛ كيمياء نسيجية مناعية (IHC)/تألق مناعي (IF) بنسبة 1:200 |
| طقم مقايسة الممتز المتبادل للإنترلوكين-6 (IL-6 ELISA kit) | Beyotime Biotechnology | PY2782 | تقدير كمية إنترلوكين-6 (IL-6) في الفئران |
| L-NAME | Beyotime Biotechnology | S0006 | مثبط NOS لفرط ضغط الدم الناتج عن نقص أكسيد النيتريك |
| جرذان ويستار الذكور | شركة Beijing HFK Bioscience Co., Ltd. | Wistar؛ SCXK (Jing) 2019-0008 | ذكور خالية من مسببات أمراض محددة، 6–٨ أسابيع، ١٨٠–٢٢٠ جم |
| جسم مضاد لـ MasR | Alomone Labs | AAR-013; RRID: AB_2039972 | جسم مضاد لمستقبل Mas؛ لطخة غربية 1:200؛ كيمياء نسيجية مناعية/تألق مناعي 1:100 |
| خلايا mHypoA-2/10 | Cedarlane Laboratories Ltd. | CLU176؛ RRID: CVCL_D384 | خط خلوي عصبي من تحت المهاد للفئران؛ الممر 3–20 |
| قارئ الأطباق الدقيقة | Thermo Scientific | Multiskan FC؛ رقم الكتالوج 51119000 | قياسات الامتصاصية لـ CCK-8 وELISA |
| MLN-4760 | شركة Beyotime Biotechnology | SF1197 | مُثبط ACE2؛ 10 µmol/L تجارب خلوية |
| الإنترلوكين 1 في الفئران (Mouse IL-1)β طقم مقايسة الممتز المقولب المناعي المرتبط بالإنزيم (ELISA) | Invitrogen/Thermo Fisher Scientific | 88-7013A-88 | إنترلوكين-1 الفأري (IL-1)β التقدير الكمي |
| عامل نخر الورم في الفئران-α طقم مقايسة الممتز المربوط بالإنزيم (ELISA kit) | Beyotime Biotechnology | PT512 | عامل نخر الورم في الفأر (Mouse TNF-α)α التقدير الكمي |
| العامل النووي كابا بـ (NF-κB)κجسم مضاد لـ p65 | تكنولوجيا إشارات الخلايا | 8242؛ RRID: AB_10859369 | العامل النووي كابا B (NF-κB)κجسم مضاد أحادي النسيلة من الأرانب B p65 (D14E12) XP؛ لطخة ويسترن 1:1,000 |
| نظام قياس ضغط الدم غير الباضع عن طريق رباط الذيل | Visitech Systems | BP-2000-R-4 | نظام تدفئة وقياس ضغط الدم باستخدام الكفة على ذيل الجرذ |
| طقم تحليل النورإبينفرين | Cloud-Clone Corp. | HEA907Ge | تقدير كمية النورإبينفرين |
| جسم مضاد لـ p-CREB | تكنولوجيا إشارات الخلايا | 9198; RRID: AB_2561044 | جسم مضاد أحادي النسيلة من الأرانب Phospho-CREB (Ser133) (87G3)؛ لطخة ويسترن 1:1,000 |
| البنسلين–ستريبتومايسين | Gibco/Thermo Fisher Scientific | 15140122 | مكمل المضادات الحيوية للمزارع الخلوية |
| كاشف مصفوفة الصمامات الثنائية الضوئية | شركة Shimadzu | SPD-M20A | كروماتوغرافيا السائل عالية الأداء المزودة بكاشف الأشعة فوق البنفسجية (HPLC UV)–الكشف الضوئي المرئي/بمصفوفة الصمامات الثنائية الضوئية (PDA) عند 360 نانومتر |
| p-NF-κالأجسام المضادة لـ p65 | تكنولوجيا إشارات الخلايا | 3031; RRID: AB_330559 | فسفو-NF-κالأجسام المضادة لـ B p65 (Ser536)؛ لطخة ويسترن 1:1,000 |
| غشاء PVDF | Beyotime Biotechnology | FFP77 | 0.45 µm غشاء لطخة ويسترن |
| معيار الكيرسيتين | Beyotime Biotechnology | SM2147 | المعيار المرجعي للكيرسيتين؛ نقاء بنسبة 98% بواسطة الكروماتوغرافيا السائلة عالية الأداء (HPLC) |
| إنترلوكين-1 في الجرذان (Rat IL-1)β طقم مقايسة الممتز الموّطن للإنزيم المرتبط (ELISA) | شركة Elabscience Biotechnology Inc. | E-HSEL-R0002 | إنترلوكين-1 للجرذان (Rat IL-1)β التقدير الكمي |
| عامل نخر الورم في الجرذ (TNF-α)α طقم مقايسة الممتز المربوط بالإنزيم (ELISA kit) | Elabscience Biotechnology Inc. | E-HSEL-R0001 | عامل نخر الورم في الجرذان (TNF-α)α التقدير الكمي |
| نظام تفاعل البوليميراز المتسلسل في الوقت الحقيقي (Real-time PCR) | Bio-Rad Laboratories, Inc. | CFX96 Touch؛ رقم الكتالوج 1855195 | تضخيم qPCR في الوقت الحقيقي وتحليل منحنى الانصهار |
| محلول ريبا المنظم لتحلل الخلايا (RIPA lysis buffer) | بيوتيم بيوتكنولوجي (Beyotime Biotechnology) | P0013B | استخلاص البروتين |
| معيار الروتين | Beyotime Biotechnology | SM2159 | المعيار المرجعي للروتين؛ بنقاء 98% وفقًا لتقنية الكروماتوغرافيا السائلة عالية الأداء (HPLC) |
| المادة المرجعية لـ Sophorae Flos | المعاهد الوطنية للرقابة على الغذاء والدواء (NIFDC)، بكين، الصين | 121270؛ رقم التشغيلة 121270-201403 | مادة مرجعية نباتية معتمدة للتحقق من أصالة براعم أزهار *S. japonicum* |
| براعم أزهار Styphnolobium japonicum | دراسة المواد النباتية | غير قابل للتطبيق | براعم زهور مجففة غير مفتوحة تم التحقق من أصالتها بمقارنتها بالمادة المرجعية Sophorae Flos التابعة لـ NIFDC |
| جسم مضاد لـ CREB الكلي | Proteintech Group, Inc. | 12208-1-AP; RRID: AB_2245417 | الأجسام المضادة متعددة النسائل للأرنب لبروتين CREB الكلي لغرض معايرة phospho-CREB |
| كاشف TRIzol | Invitrogen/Thermo Fisher Scientific | 15596026 | عزل الحمض النووي الريبوزي (RNA) |
| طقم كشف الموت الخلوي المبرمج بتقنية TUNEL | Beyotime Biotechnology | C1086 | الكشف عن الموت الخلوي المبرمج للعصبونات |
| فالسارتان | Sigma-Aldrich | SML0142 | مضاد مستقبلات AT1؛ ضابط إيجابي خافض لضغط الدم |
المراجع
- He X, et al. Local and traditional uses, phytochemistry, and pharmacology of Sophora japonica L.: a review. J Ethnopharmacol. 2016;187:160-182.
- Madden E, McLachlan C, Oketch-Rabah H, Calderon AI. United States Pharmacopeia comprehensive safety review of Styphnolobium japonicum flower and flower bud. Phytother Res. 2022;36(5):2061-2071.
- Shi W, et al. Bioactive flavonoids from Flos Sophorae. J Nat Med. 2017;71(3):513-22.
- Paniwnyk L, Beaufoy E, Lorimer JP, Mason TJ. The extraction of rutin from flower buds of Sophora japonica. Ultrason Sonochem. 2001;8(3):299-301.
- Xie Z, et al. Extraction and isolation of flavonoid glycosides from Flos Sophorae Immaturus using ultrasonic-assisted extraction followed by high-speed countercurrent chromatography. J Sep Sci. 2014;37(8):957-965.
- Wang G, et al. Efficient extraction of flavonoids from Flos Sophorae Immaturus by tailored and sustainable deep eutectic solvent as green extraction media. J Pharm Biomed Anal. 2019;170:285-294.
- Le NT, Nguyen TPD, Ho DV, Phung HT, Nguyen HT. A green method to extract rutin from Sophora japonica L. MethodsX. 2023;11:102479.
- Liu Y, et al. Sophora japonica flowers and their main phytochemical, rutin, regulate chemically induced murine colitis in association with targeting the NF-kappaB signaling pathway and gut microbiota. Food Chem. 2022;393:133395.
- Hao G, et al. Rutin inhibits neuroinflammation and provides neuroprotection in an experimental rat model of subarachnoid hemorrhage, possibly through suppressing the RAGE-NF-kappaB inflammatory signaling pathway. Neurochem Res. 2016;41(6):1496-1504.
- Dabeek WM, Marra MV. Dietary quercetin and kaempferol: bioavailability and potential cardiovascular-related bioactivity in humans. Nutrients. 2019;11(10):2288.
- Patel RV, et al. Therapeutic potential of quercetin as a cardiovascular agent. Eur J Med Chem. 2018;155:889-904.
- Han X, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010.
- Le K, et al. Quercetin alleviates neonatal hypoxic-ischemic brain injury by inhibiting microglia-derived oxidative stress and TLR4-mediated inflammation. Inflamm Res. 2020;69(12):1201-1213.
- Mi Y, Wu Q, Yuan W, Chen F, Du D. Role of microglia M1/M2 polarisation in the paraventricular nucleus: new insight into the development of stress-induced hypertension in rats. Auton Neurosci. 2018;213:71-80.
- Wei B, et al. Microglia in the hypothalamic paraventricular nucleus sense hemodynamic disturbance and promote sympathetic excitation in hypertension. Immunity. 2024;57(9):2030-42.e8.
- Wang M, et al. Microglia-mediated neuroinflammation: a potential target for the treatment of cardiovascular diseases. J Inflamm Res. 2022;15:3083-3094.
- Xu P, Sriramula S, Lazartigues E. ACE2/ANG-(1-7)/Mas pathway in the brain: the axis of good. Am J Physiol Regul Integr Comp Physiol. 2011;300(4):R804-817.
- Bader M. ACE2, angiotensin-(1-7), and Mas: the other side of the coin. Pflugers Arch. 2013;465(1):79-85.
- Sriramula S, Cardinale JP, Lazartigues E, Francis J. ACE2 overexpression in the paraventricular nucleus attenuates angiotensin II-induced hypertension. Cardiovasc Res. 2011;92(3):401-408.
- Silva AQ, Santos RA, Fontes MA. Blockade of endogenous angiotensin-(1-7) in the hypothalamic paraventricular nucleus reduces renal sympathetic tone. Hypertension. 2005;46(2):341-348.
- Biancardi VC, Stranahan AM, Krause EG, de Kloet AD, Stern JE. Cross talk between AT1 receptors and Toll-like receptor 4 in microglia contributes to angiotensin II-derived ROS production in the hypothalamic paraventricular nucleus. Am J Physiol Heart Circ Physiol. 2016;310(3):H404-115.
- Sun XY, et al. Rutin prevents tau pathology and neuroinflammation in a mouse model of Alzheimer’s disease. J Neuroinflammation. 2021;18(1):131.
- Shi P, et al. Brain microglial cytokines in neurogenic hypertension. Hypertension. 2010;56(2):297-303.
- Shen XZ, et al. Microglia participate in neurogenic regulation of hypertension. Hypertension. 2015;66(2):309-316.
- Simko F, et al. Effect of melatonin on the renin-angiotensin-aldosterone system in L-NAME-induced hypertension. Molecules. 2018;23(2):265.
- Selamoglu Talas Z. Propolis reduces oxidative stress in L-NAME-induced hypertension rats. Cell Biochem Funct. 2014;32(2):150-154.
- Moreira JD, et al. Inhibition of microglial activation in rats attenuates paraventricular nucleus inflammation in Gαi2 protein-dependent, salt-sensitive hypertension. Exp Physiol. 2019;104(12):1892-910.
- Wu Y, Sun R, Ren S, Zengin G, Li M. Neuronal reshaping of the tumor microenvironment in tumorigenesis and metastasis: bench to clinic. Medicine Advances. 2025;3(4):364-371.
- Xu J et al. Advancements in imaging technologies and AI integration for neurodegenerative disease management: a narrative review. Mol Imaging. 2025;24:15353508251393056.