يوفر هذا البروتوكول طريقة قابلة للتكرار لإنتاج معلقات خلوية أحادية ذات حيوية عالية من أنسجة الغدة الثديية والأورام الثديية لدى الفئران، بحيث تحافظ على المستضدات السطحية للخلايا للتحليلات اللاحقة، بما في ذلك قياس التدفق الخلوي وتسلسل الحمض النووي الريبي (RNA) أحادي الخلية.
مقالة منهجية
تفكيك أنسجة الغدة الثديية والأورام لدى الفئران لإنشاء معلقات من خلايا أحادية ذات حيوية عالية
في هذه المقالة
ملخص
الملخص
يساعد تفكيك الأنسجة إلى معلقات من خلايا مفردة للتحليل في فهم ما يحدث على المستوى الخلوي في البيئة الدقيقة للورم. ويتمثل التحدي المستمر في الحصول على الخلايا الأولية والاستفادة منها في إنتاج معلقات خلوية عالية الجودة تحافظ على خصائص الخلايا لعمليات المعالجة اللاحقة، بما في ذلك تسلسل الحمض النووي الريبي للخلايا المفردة (scRNA-Seq) أو التنميط المناعي عبر قياس التدفق الخلوي. عادةً ما يتم تفكيك الأنسجة باستخدام مزيج من التقطيع الميكانيكي، والهضم الإنزيمي، والترشيح، وتؤدي عدة عوامل في كل خطوة إلى إدخال تباين في المنتج الناتج. لذلك، يجب اتخاذ خطوات تحسين لتحديد الطريقة التي تعمل بشكل أفضل لأي نوع محدد من الأنسجة. على سبيل المثال، تكون أنسجة الوسادة الدهنية الثديية غنية بالخلايا الدهنية، مما يجعل من الأصعب الحصول على معلق خلوي نقي والحفاظ بنجاح على الخلايا الحية. ونتيجة لذلك، يمثل توليد معلقات خلوية قابلة للمقارنة من أنسجة الوسادة الدهنية الثديية والأورام الظهارية تحدياً. يضع هذا البروتوكول طريقة قابلة للتكرار وفعالة من حيث التكلفة لتوليد معلقات من خلايا مفردة عالية الحيوية من أنسجة الغدد الثديية والأورام لدى الفئران تحافظ على الحاتمات الموجودة على سطح الخلايا لإجراء مزيد من التحليلات. وقد استُخدم هذا الإجراء لإنتاج مكتبات scRNA-Seq عالية الجودة وإجراء التنميط المناعي باستخدام قياس التدفق الخلوي متعدد المعايير.
المقدمة
يتيح تفكيك الأنسجة الحصول على معلقات من الخلايا المفردة وتوصيف أنواع الخلايا الموجودة داخل الأنسجة. ويكتسب هذا الأمر أهمية خاصة عند تحليل الاستجابة للعلاج المناعي، حيث يمكن للخلايا المناعية المرتشحة أن تساعد في توضيح الآلية الكامنة وراء الاستجابات المناعية النوعية للأنسجة. يؤدي التطعيم بالحمض النووي الريبوزي منقوص الأكسجين (DNA) الذي يشفر الجين الورمي HER2/neu إلى زيادة الحماية ضد الأورام الثديية التلقائية المدفوعة بـ HER2/neu في النماذج الفئرانية1. بالإضافة إلى ذلك، تبيّن أن التطعيم بـ DNA يحفز استجابة جهازية تتميز بإنتاج الأجسام المضادة والخلايا التائية المفرزة للإنترفيرون-γ (IFN-γ)1,2,3. لهذا السبب، ركزنا على تطوير بروتوكول لتفكيك الأورام الثديية وأنسجة الغدد الثديية الغنية بالدهون لتمكين تعداد المناعة الموضعية. يتطلب تفكيك الأنسجة إلى خلايا مفردة استخدام طرق إنزيمية، أو ميكانيكية، أو كليهما. وتتمثل إحدى التحديات المرتبطة بالتفكيك الإنزيمي في أن هذه الطرق تتطلب التعرض للإنزيمات لفترة طويلة، غالباً ما تكون طوال الليل4. ويؤدي التعرض المفرط إلى تحلل الخلايا الفردية والمؤشرات السطحية، مع ظهور الآثار الأكثر ضرراً على الخلايا المناعية5,6. يمكن أن يكون الهضم الميكانيكي خياراً جيداً لتحرير الخلايا المناعية مثل الخلايا اللمفاوية والبلاعم، رغم أنه لا يفكك السداة بشكل فعال للحصول على عينة ممثلة من الخلايا الظهارية والسدائية. ومؤخراً، تم استكشاف تقنيات الموائع الدقيقة لتفكيك الأنسجة، واستُخدمت لأول مرة لتفتيت التجمعات الخلوية في المحلول7. وقامت مجموعة بحثية بتطبيق نهج الموائع الدقيقة لمزيد من تفكيك الأنسجة المفرومة باستخدام قوى القص داخل الجهاز8. وبعد 60 min من التفكيك المُحسّن، حققت هذه الطريقة زيادة بمقدار ضعفين في الخلايا الظهارية وزيادة بمقدار 4 أضعاف في الخلايا البطانية مقارنة ببروتوكول الهضم الإنزيمي التقليدي في أنسجة الثدي. ومع ذلك، ظهرت تحديات عند قياس إنتاجية الخلايا الكبدية في عينة من الكبد، حيث انخفضت الإنتاجية بمرور الوقت، ويرجع ذلك على الأرجح إلى حجم الخلايا الكبدية وهشاشتها. وبناءً على ذلك، فإن إيجاد حل وسط يحصل على عينة ممثلة ونظيفة من أنواع خلوية متعددة مع الحفاظ على سلامة الخلايا والحواتم السطحية هو أمر بالغ الأهمية.
تتكون خلطات الهضم المستخدمة من الإنزيمات عادةً من مزيج من الكولاجينازات العامة9,10، أو التريpsin (دليل تفكيك الأنسجة الصلبة)4,10,11، أو الهيالورونيداز9,10,11، أو الديسباز4,9,10، وتتطلب أوقاتاً متفاوتة لتحقيق هضم فعال. يستخدم البروتوكول الموصوف هنا نوعين محددين من الكولاجيناز، وهما الكولاجيناز من النوع الثاني (collagenase type II) والكولاجيناز D، كإنزيمات أساسية للهضم، مع استخدام حمض إيثيلين ثنائي أمين رباعي الخليك (EDTA) في دور ثانوي لمزيد من إضعاف الروابط بين الخلايا عن طريق عملية المخلبية. يعد الكولاجيناز من النوع الثاني إنزيماً أساسياً للتفكيك تنتجه بكتيريا Clostridium histolyticum ويساعد في هضم شظايا الكولاجين الصغيرة في المصفوفة خارج الخلوية. كما يتم إنتاج الكولاجيناز D بواسطة C. histolyticum وقد استُخدم على نطاق واسع لتفكيك مجموعة متنوعة من الأنسجة، مثل أنسجة الرئة، والقلب، والعضلات، والعظام، والأعصاب، والأنسجة البطانية. ويساعد هذا الكولاجيناز في الحفاظ على وظيفة وسلامة بروتينات سطح الخلية، وهو عامل مهم لعمليات التنميط المناعي اللاحقة عبر قياس التدفق الخلوي. وبالإضافة إلى الكولاجيناز، يتم هضم الأنسجة في وجود إنزيم ديوكسي ريبونوكلياز I (DNase I)، الذي يعمل على تكسير الحمض النووي الريبوزي منقوص الأكسجين (DNA) الحر، وبالتالي إزالته من معلق الخلايا الناتج.
ثمة تحدٍ آخر ينفرد به تفكيك الغدد الثديية وهو وجود الخلايا الدهنية ضمن العينة. فمع تقدم عمر الفأر، تتراكم في الوسادة الدهنية الثديية كمية كبيرة من الخلايا الدهنية. وتعتبر هذه الخلايا أكثر هشاشة وعرضة للتمزق أثناء عمليات المعالجة اللاحقة، مما قد يؤدي إلى إطلاق RNA والحطام داخل الخلوي في معلق الخلايا، وهو ما يزيد من RNA المحيط ويعيق تحضير مكتبة scRNA-Seq ويقلل من جودة العينة. كما يمكن أن يؤدي DNA خارج الخلوي إلى تكوين تجمعات خلوية؛ لذا يجب إزالة أي خلايا دهنية متبقية بعد التفكيك الإنزيمي الأولي للحفاظ على سلامة العينة. ولحسن الحظ، يمكن الاستفادة من خاصية الطفو التي تتميز بها الخلايا الدهنية للمساعدة في فصلها عن الخلايا المتبقية أثناء عملية الطرد المركزي. فباستخدام بروتوكول طرد مركزي، تظل الخلايا الدهنية على سطح السائل الطافي، وهذا يسمح بالتخلص من هذه الخلايا مع السائل الطافي، مع تجنب اندماجها في الرواسب الخلوية الأساسية. وعلى الرغم من أن ذلك ليس إلزامياً، إلا أن إدراج تباطؤ تدريجي يقلل من قوى كوريوليس داخل الأنبوب، مما يساعد في الحفاظ على الخلايا الدهنية في طبقة متميزة في الأعلى، خاصة عند التعامل مع أنسجة ثديية غنية جداً بالخلايا الدهنية أو عندما يكون الهدف من الدراسة هو إزالة الخلايا الدهنية12,13.
مع وضع هذه الاعتبارات الخاصة بالأنسجة في الاعتبار، سعينا إلى وضع بروتوكول يتسم بفعالية التكلفة، ولا يتطلب معدات متخصصة، ويقدم عينة خلوية ممثلة للنسيج الأصلي بجودة عالية وقابلية تكرار ثابتة.
البروتوكول
أُجريت جميع الإجراءات في هذا البروتوكول وفقاً لسياسة خدمة الصحة العامة في الولايات المتحدة بشأن استخدام حيوانات المختبر، وبموافقة اللجنة المؤسسية لرعاية واستخدام الحيوان بجامعة ولاية ميشيغان.
1. تحضير معلق خلوي أحادي من نسيج ورم فأري ونسيج الغدة الثديية:
هضم الأنسجة
- تخلص من جميع أنسجة الفئران الزائدة أو غير المستخدمة في النفايات البيولوجية. ضع المواد البلاستيكية الملوثة بأنسجة أو خلايا الفئران في النفايات البيولوجية للتخلص منها. اجمع المحاليل التي تحتوي على خلايا في حاوية نفايات بيولوجية سائلة وعالجها بـ 10% مبيض قبل التخلص منها.
- تأكد من تحضير خليط هضم الأنسجة الطازج مباشرة قبل عملية هضم الأنسجة. تتطلب كل عينة 10 mL من خليط الهضم (10 mL من وسط Roswell Park Memorial Institute (RPMI)، و60 U من DNase I، و25 mg من Collagenase D، و50 mg من Collagenase type II). يحفظ في درجة حرارة الغرفة (RT) حتى وقت الاستخدام.
- قم بإعدام الفئران عن طريق خلع الفقرات العنقية، مع استخدام استرواح الصدر الثنائي كطريقة ثانوية للإعدام، مع أو بدون تفريغ الدم.
- ضع الفأر في وضع الاستلقاء الظهري، مع مد الساقين للخارج وتثبيتهما بدبابيس.
- رش الفأر تماماً بـ 70% إيثانول لمنع تلوث العينة بالفراء المتساقط.
- قم بعمل شق واحد على طول الخط الناصف للفأر من الوسادة الدهنية الإربية إلى الرقبة، مع الحرص على عدم ثقب البريتون، يليه شق في كل ساق لتشكيل شق على شكل حرف "Y" مقلوب.
- قم بمد الجلد، باستخدام تقنيات التشريح الكليل لفصل الجلد عن البريتون الكامن تحته، وثبت الجلد بشكل مسطح على لوح التشريح.
- قم بإزالة الأورام متوسطة الحجم أو الغدد الثديية/الوسادات الدهنية وضعها في أنبوب مخروطي سعة 50 mL مع 5 mL من وسط غسيل الخلايا R10 (وسط R10 هو RPMI) مع 10% مصل جنين البقر (FBS).
- تجنب استخدام الأورام النخرية أو الممتلئة بالدم (والتي تظهر بلون داكن جداً وتكون رخوة) إن أمكن.
- داخل كابينة السلامة البيولوجية، انقل الوسادات الدهنية الثديية والأورام فقط إلى طبق بتري نظيف. قم بتقطيع النسيج بدقة باستخدام شفرتي مشرط جراحي حتى يتكون قوام يشبه العجينة، ثم ضعه في أنبوب نظيف سعة 50 mL. نفذ هذه الخطوة في درجة حرارة الغرفة (RT).
- أضف 10 mL من خليط الهضم لكل عينة.
- حضن العينات في حاضنة هزازة عند 37 °C وبسرعة 250 دورة في الدقيقة (rpm) لمدة 30 min.
- أضف 0.5 M EDTA ليصل التركيز النهائي إلى 10 mM (200 µL EDTA لكل 10 mL من محلول الهضم المنظم).
- أعد العينات إلى الحاضنة الهزازة عند 37 °C و250 rpm لمدة 5 min إضافية.
- أضف 40 mL من وسط غسيل الخلايا R10 لإيقاف التفاعل.
- قم بترشيح الخلايا المهضومة عبر مرشح 70 µm في أنبوب نظيف سعة 50 mL لإزالة الكتل.
- قم بالطرد المركزي عند 500 x g باستخدام إعداد التسارع 9 وإعداد التباطؤ 6، عند 4 °C لمدة 10 min (إذا كنت مهتماً بالخلايا اللمفاوية فقط، يمكن تقليل قوة الطرد المركزي إلى 300 x g لمدة 5 min)14 لترسيب الخلايا. وبما أن هذه العملية تتضمن تفكيك أنسجة الغدة الثديية الغنية بالخلايا الدهنية، فإن بروتوكول الكبح المنخفض يساعد في الحفاظ على التدرج الذي تشكله الطبيعة الطافية للخلايا الدهنية أثناء الطرد المركزي13.
- تخلص من السائل الطافي في النفايات البيولوجية، وفتت الراسب، وأضف 40 mL من وسط غسيل الخلايا، ثم قم بالطرد المركزي كما سبق (الخطوة 1.15). يمكن إعادة الكبح إلى التباطؤ الكامل في الخطوات اللاحقة؛ حيث إن عدم القيام بذلك لن يؤثر سلباً على العينة.
- اغسل بـ 40 mL من وسط غسيل الخلايا R10 وقم بالطرد المركزي كما في الخطوة 1.15 لإجمالي 3 غسلات.
- فتت الراسب وأعد تعليق الخلايا في 2 mL من محلول 1 × PBS البارد.
- أضف حجمين من محلول 1× RBC lysis buffer. خفف مركز محلول التحلل 10 × إلى 1 × باستخدام الماء (أي 2 x = 2 mL من 1 × PBS + 4 mL محلول تحلل). نفذ هذه الخطوة في درجة حرارة الغرفة (RT).
- حضن العينات في درجة حرارة الغرفة لمدة 5 min مع خلطها بلطف من حين لآخر عن طريق قلب الأنبوب.
- عادل محلول RBC lysis buffer بإضافة حجم مساوٍ من وسط غسيل الخلايا R10.
- قم بترشيح محلول الخلايا عبر مرشح 30 µm في أنبوب سعة 15 mL لإزالة الحطام الخلوي.
- أكمل الحجم إلى 15 mL باستخدام وسط غسيل الخلايا R10.
- قم بالطرد المركزي عند 500 x g لمدة 10 min عند 4 °C.
- أزل السائل الطافي تماماً وأعد التعليق في وسط غسيل الخلايا حتى يصل الحجم النهائي إلى 5 mL للعد وتقييم الحيوية. أعد التعليق إلى التخفيف المطلوب. انتقل إلى الصبغ من أجل قياس التدفق الخلوي أو التحضير لـ scRNA-seq.
- احتفظ بالخلايا على الثلج بين الخطوات ما لم ينص على خلاف ذلك.
2. صبغ معلق خلوي أحادي الخلايا لقياس التدفق الخلوي
- انقل الخلايا المطلوبة إلى أنبوب بولي بروبيلين مستدير القاع سعة 5 mL واحفظه على الثلج.
- قم بتحضير محلول صبغ الخلايا باستخدام الأجسام المضادة أحادية النسيلة (mAb) المطلوبة والمقترنة بعلامات فلورية في حجم إجمالي قدره (n + 1) × 100 µL باستخدام محلول flow PBS (المكون من 490 mL من 1x PBS و10 mL من FBS و0.5g من أزيد الصوديوم). حضّر (n+1) × 100 µL من محلول الصبغ، حيث n = عدد العينات (على سبيل المثال، 6 × 100 µL = 600 µL لـ 5 عينات).
ملاحظة: أزيد الصوديوم مادة مسرطنة في شكلها المسحوق. ارتدِ معدات الوقاية الشخصية المناسبة واغسل جميع الأدوات للتأكد من ذوبان الأزيد في المحلول قبل التخلص منه في حاوية النفايات الكيميائية. - قم بطرد مركزي لكل عينة سيتم صبغها لمدة 5 min عند 4 °C وبقوة 500 x g. أعد تعليق الخلايا في 100 µL من محلول الصبغ. وأعد تعليق الضوابط غير المصبوغة في 1000 µL من محلول flow PBS.
- غطِّ الأنابيب لحمايتها من الضوء واتركها لتحضن عند 4 °C لمدة 15 min.
ملاحظة: يمكن أن تتحلل الأجسام المضادة المسمى فلورياً عند التعرض المطول للضوء، لذا يجب أن تظل مغطاة أثناء التحضين وتخزين العينات اللاحق. - أضف 1 mL من محلول flow PBS إلى كل أنبوب مصبوغ وقم بالطرد المركزي عند 500 x g, 4 °C، لمدة 5 min للغسل.
- تخلص من الراشح، وفتت الراسب، وأعد تعليق الخلايا في 1 mL من محلول flow PBS. ثم قم بالطرد المركزي كما سبق (الخطوة 2.5).
- كرر الخطوة 2.6 ليكون المجموع ثلاث غسلات. ثم تخلص من الراشح وفتت الرواسب.
- أعد تعليق الخلايا في محلول التثبيت أو في محلول flow PBS، اعتماداً على الصبغات اللاحقة المطلوبة.
- استخدم هذه الخطوات في حال تثبيت الخلايا أو إجراء صبغ داخل خلوي. خلاف ذلك، انتقل إلى الخطوة 2.10:
- أضف 200 µL من محلول النفاذية/التثبيت إلى كل عينة للسماح بالصبغ داخل النواة.
- غطِّ الخلايا بورق ألومنيوم واتركها لتحضن لمدة 20 min على الأقل عند 4 °C. إذا كنت تخطط لتشغيل العينات في يوم آخر، يمكن الاحتفاظ بالعينات مغطاة عند 4 °C طوال الليل في هذه الخطوة.
- بعد التثبيت، قم بطرد العينات مركزياً عند 500 x g لمدة 5 min وأعد تعليقها في 1 × من منظم النفاذية (المخفف في الماء).
- عند تحضير صبغ ثانوي أو صبغ داخل خلوي، اصبغ العينات بالتخفيف المطلوب في 1x من منظم النفاذية. ضع الأنابيب المغطاة في المحضن عند 4 °C لمدة 15–20 min.
- أضف 1 mL من 1x منظم النفاذية إلى كل أنبوب مصبوغ وقم بالطرد المركزي عند 500 x g لمدة 5 min للغسل.
- تخلص من الراشح، وفتت الراسب، وأعد تعليق الخلايا في 1 mL من 1x منظم النفاذية. ثم قم بالطرد المركزي كما سبق (الخطوة 9.5).
- كرر الخطوة 2.9.6 ليكون المجموع ثلاث غسلات. ثم تخلص من الراشح وفتت الرواسب.
- أعد تعليق الخلايا في 200 µL من 1x منظم النفاذية واحفظها على الثلج حتى تصبح جاهزة للتشغيل على مقياس التدفق الخلوي.
- في حال عدم تثبيت الخلايا، أعد تعليقها في 200 µL من محلول flow PBS واحفظها على الثلج حتى تصبح جاهزة للتشغيل على مقياس التدفق الخلوي.
- لتحليل scRNA-Seq، اتبع البروتوكولات الخاصة بإزالة الحطام والخلايا الميتة، وتقييم جودة RNA، وإنتاج المكتبات.
3. تقييم جودة مكتبة scRNA-Seq
- ابحث عن نسبة مئوية عالية من القراءات التي تم تعيينها بثقة إلى الخلايا. ومن الناحية المثالية، يجب أن يكون هذا الرقم أكبر من 90%.
- قارن أعداد المعرفات الجزيئية الفريدة (UMI) مع الرموز الشريطية (barcodes). ستظهر العينة عالية الجودة انخفاضاً حاداً في أعداد UMI عند حوالي 10,000 رمز شريطي («منعطف الركبة» في مخطط ترتيب الرموز الشريطية).
- افحص خرائط التقريب والاسقاط المتعدد الطبقات الموحد (UMAPs). ستظهر العينة عالية الجودة من الأنسجة المعقدة، مثل الغدد الثديية أو أورام الثدي التلقائية، تجمعات خلوية متميزة ومنفصلة جيداً.
- حدد عدد الجينات الميتوكوندرية (mt-) التي يتم التعبير عنها؛ حيث تشير التجمعات التي تحتوي على أعداد عالية من الجينات الميتوكوندرية إلى أن الخلايا ميتة أو في طور الموت.
النتائج
يُعد HER2 جينًا ورميًا يحفز نمو أورام الثدي العدوانية لدى النساء، كما أن ما يصل إلى 70% من النساء اللواتي يتلقين علاجات بالأجسام المضادة أحادية النسيلة التي تستهدف HER2 إما لا يستجبن للعلاج أو يطورن مقاومة تجاه العلاج الموجه لـ HER215,16,17,18. ويتمثل الهدف النهائي في تنشيط استجابة مناعية ضد HER2/neu لتحسين المناعة ضد HER2 وزيادة فرص النجاة. ولدراسة المناعة ضد HER2/neu، تُستخدم نماذج فئران ذات كفاءة مناعية تطور أورام ثدي تلقائية يحفزها HER2/neu2,19. يتم تشفير HER2 بواسطة الجين البشري Erbb2، بينما يتم تشفير neu بواسطة جين Erbb2 في الجرذان. وتحمل فئران BALB NeuT جينًا منقولاً من جرذ neu محول (NeuT)، يتم تحفيزه بواسطة محفز MMTV19. ويتم التعبير عن Neu في الغدد الثديية لإناث الفئران البالغة من سلالة BALB، مما يؤدي إلى تطور سرطان القنوات (الشكل 1A، الإطار الداخلي) في جميع الإناث المعدلة وراثيًا في أي من الغدد الثديية أو جميعها. ويؤدي التعبير المستمر عن neu إلى ظهور أورام ملموسة بين عمر 14 و19 أسبوعًا، والتي تنمو بشكل تدريجي1. ويمكن أن يؤدي تطعيم الفئران المعدلة وراثيًا بحمض DNA بلازميدي يشفر كلاً من neu ذاتي المنشأ وHER2 غير ذاتي المنشأ (يسمى pNeuE2TM) إلى كسر التسامح المناعي تجاه neu، مما يؤدي إلى زيادة الأجسام المضادة متعددة النسائل الموجهة لـ neu في الجهاز الدوري وزيادة الخلايا التائية الطحالية المفرزة لـ IFN-γ1. وقد أدت هذه الاستجابة المناعية إلى رفض خلايا ورم TUBO التي تعبر عن neu. ومع أن الاستجابة الجهازية توفر معلومات قيمة، إلا أنها لا تسمح لنا بفهم آلية العمل في موقع الورم. لذلك، شرعنا في تطوير بروتوكول تفكيك لأنسجة الغدد الثديية وأنسجة أورام الثدي من شأنه أن ينتج خلايا فردية ذات حيوية عالية مع الحفاظ على علامات سطح الخلية. يوفر الشكل 1 نظرة عامة على سير العمل. وباختصار، بعد الجمع، يتم تقطيع النسيج بدقة باستخدام مشارط (الشكل 1B) ووضعه في محلول هضم الأنسجة القائم على RPMI الذي يحتوي على مزيج من جزءين من collagenase type II مقابل جزء واحد من collagenase D و DNase I لمدة 30 دقيقة في حاضنة هزازة (الشكل 1C–D)، يليه 5 دقائق إضافية مع 0.5 M EDTA (الشكل 1E). يتم إيقاف الهضم بإضافة محلول غسيل يحتوي على FBS، ويتم ترشيح الخليط لإزالة حطام الأنسجة (الشكل 1F). وبعد خطوات الغسيل وتحلل خلايا الدم الحمراء (الشكل 1G–H)، يتم تمرير الخلايا عبر مصفاة 30 µm وعدّها (الشكل 1I–K و الشكل 2). وعند هذه النقطة، يمكن تخصيص الخلايا لسير العمل اللاحق مثل قياس التدفق الخلوي أو تسلسل الحمض النووي الريبوزي أحادي الخلية scRNA-Seq.
لإجراء مقارنة مباشرة، تم تنفيذ عملية التفكيك بالتوازي باستخدام طقم تجاري. تم اتباع البروتوكول المنشور للأورام "الصلبة" (Tough)، وبعد تحييد الإنزيم، عولجت العينات بنفس الطريقة (أي تحلل كرات الدم الحمراء RBC lysis، إلخ). وباستخدام الطقم التجاري، تم استعادة 1.3 × 10⁶ cells/mL بنسبة حيوية بلغت 76%، بينما تم استعادة 4.5 × 10⁶ cells/mL بنسبة حيوية بلغت 89% باستخدام البروتوكول الموضح هنا (الشكل 2A،B). كانت كمية الحطام بين البروتوكولين متشابهة بعد تحلل كرات الدم الحمراء. ولإزالة الخلايا الميتة، تمت معالجة 1 × 10⁷ cells من كل بروتوكول عبر مسار إزالة الخلايا الميتة. استعاد الطقم التجاري 1.3 × 10⁶ cells/mL بنسبة حيوية 96% مقارنة بـ 1.94 × 10⁶ cells/mL ونسبة حيوية 98% للبروتوكول المذكور هنا (الشكل 2C،D). وبالتالي، فإن البروتوكول المذكور هنا حقق إنتاجية أعلى من الخلايا الحيوية للتحليلات اللاحقة دون الحاجة إلى معدات متخصصة.
لتقييم جودة وقابلية تكرار المعلقات الخلوية التي تم الحصول عليها من البروتوكول المذكور هنا بشكل محدد، جُمعت عينات من الغدة الثديية من إناث فئران BALB وفئران BALB NeuT الساذجة التي تتراوح أعمارها بين 16 و18 أسبوعاً. احتوت أنسجة BALB NeuT على كل من أنسجة الغدة الثديية والأنسجة الورمية. تم أخذ أنسجة من الوسادات الدهنية الثديية الإربية (الغدد الثديية 4 و9)، بما في ذلك النسيج الورمي من BALB NeuT، وفُككت إلى محلول متجانس للتحليلات اللاحقة. يرجى ملاحظة أنه تم استئصال العقد اللمفاوية الحارسة قبل جمع الغدة الثديية.
بعد المعالجة، تم تقييم العينات بواسطة قياس التدفق الخلوي للتأكد من الاحتفاظ بالعلامات الموجودة على سطح الخلايا وحيوية الخلايا (الشكل 3)، والتحليل بواسطة تسلسل الحمض النووي الريبي أحادي الخلية scRNA-Seq (الشكل 4) للتحقق من جودة تحضير الخلايا لإنشاء المكتبة. بلغ متوسط حيوية الخلايا المفردة المشتقة من الغدة الثديية أو الورم ≥85% قبل إزالة الخلايا الميتة. ولإنتاج تحضير خلوي بدائي عالي الحيوية لـ scRNA-Seq، يمكن استخدام أطقم إزالة الخلايا الميتة والحطام المتوفرة تجارياً. وبعد اتباع هذه البروتوكولات، تراوحت حيوية تحضيرات الخلايا المفردة من 94% إلى 98% (الشكل 2C,F). تم تثبيت الخلايا الناتجة عن هذا البروتوكول ومقارنتها بطريقة التثبيت الموصى بها لـ scRNA-Seq، والتي تسمى بروتوكول التفكيك بالتثبيت أولاً التجاري، باستخدام الثيرمولايسين التجاري (الشكل 2E,F). وقد أنتج بروتوكول التفكيك بالتثبيت أولاً التجاري 1.5 × 10⁷ خلايا/مل، ولم يتم قياس الحيوية لأنه يقوم بتثبيت الأنسجة قبل التفكيك، بينما أنتج هذا البروتوكول 8.6 × 10⁶ خلايا/مل من حيوية بدائية بلغت 94%. وبذلك، أنتجت طريقة بروتوكول التفكيك بالتثبيت أولاً التجاري عدداً من الخلايا يماثل أو يزيد قليلاً عن عدد الخلايا في البروتوكول المذكور هنا.
تم صبغ الخلايا وتقييم واسمات سطح الخلية باستخدام قياس التدفق الخلوي. تم تحديد الخلايا الظهارية (الشكل 3A) والأرومات الليفية (الشكل 3B) عن طريق الصبغ باستخدام EpCAM و Pdgfrb/CD140a mAb، على التوالي. ونظراً لأن التطعيم ثلاث مرات لفئران BALB NeuT باستخدام DNA لـ HER2/neu أدى إلى تأخير ملحوظ في ظهور الورم وفي المناعة الجهازية، كان من المثير للاهتمام بشكل خاص تقييم الخلايا المناعية في الغدد الثديية والأورام. شكلت خلايا CD45+ ذات السلالة المناعية حوالي 50% من المعلق الخلوي (الشكل 3C). وتم تقييم وجود الخلايا البائية (B cells) والخلايا التائية (T cells) باستخدام B220/CD45R و CD3 (الشكل 3D)، كما تم تقسيم الخلايا التائية CD3+T إلى خلايا CD4 و CD8 (الشكل 3E). ولتقييم القدرة على الاحتفاظ بالمجموعات الخلوية النادرة، صُبغت العينات للبحث عن الخلايا التائية التنظيمية. ولتحقيق ذلك، تم تثبيت عينة الخلايا وصبغها للبحث عن Foxp3، وهو عامل نسخ محدد للخلايا التائية التنظيمية (Treg). عادةً ما تشكل الخلايا التائية التنظيمية نسبة صغيرة من إجمالي الخلايا المناعية في الجسم، رغم أن دورها في تعديل الجهاز المناعي يمثل أهمية كبيرة في مجالات أبحاث السرطان وأمراض المناعة الذاتية. لذا، فإن الالتقاط الموثوق لمجموعات الخلايا المناعية الصغيرة ولكن القوية، مثل الخلايا التائية التنظيمية، يعد أمراً حاسماً عند النظر في بروتوكول تفكيك الأنسجة. تم تحديد الخلايا التائية التنظيمية Foxp3+ أولاً عن طريق فرز الخلايا CD3+CD4+ للتعبير عن CD25 (مستقبل IL-2 عالي الألفة) و Foxp3. وباستخدام استراتيجية الفرز هذه، كانت حوالي 5% من خلايا CD4+ موجبة لكلا الواسمين، بينما كانت حوالي 25% موجبة لـ Foxp3 ولكنها منخفضة أو سالبة لـ CD25 (الشكل 3F). تم تقييم CD64 في عينة ورم منفصلة للتأكد من إمكانية عزل البلاعم CD64+ بنجاح باستخدام تقنية التفكيك هذه (الشكل 3G). ولتحديد المجموعات النخاعية الأوسع، تم تحديد البلاعم F4/80+ والخلايا F4/80- CD11c+، التي عُرِّفت كخلايا غصنية (الشكل 3H). شكلت الخلايا الغصنية حوالي 3% من إجمالي الخلايا، بينما شكلت الخلايا المتعادلة CD11b+Ly6G+ حوالي 5% (الشكل 3H,I). وبناءً على ذلك، تم تحقيق استعادة موثوقة والحفاظ على الحاتمات السطحية في خلايا CD45+ بعد تفكيك كل من أنسجة الغدة الثديية وأنسجة الورم باستخدام البروتوكول المذكور أعلاه.
يمكن تقييم سلامة الـ RNA في العينات قبل تقديمها لإنشاء مكتبة scRNA-Seq. وقد أعطت العينات الطازجة التي تم تحضيرها باستخدام البروتوكول التجاري أو البروتوكول المذكور هنا نسب A260/230 بلغت 1.9 و 2.2 على التوالي. أما العينات المثبتة فيتم تقييمها من خلال تحديد نسبة القراءات التي تزيد عن 200 نيوكليوتيد (nt). وقد أدى البروتوكول المذكور هنا، المتبوع بالتثبيت الفوري والتخزين عند –80 °C، إلى احتواء 83% من العينة على قراءات > 200 nt.
جودة العينات
بعد تحضير مكتبة تسلسل الحمض النووي الريبي أحادي الخلية (scRNA-Seq) وإجراء التسلسل، تم تقييم جودة العينة (الشكل 4يتم أولاً تقييم مكتبات عينات تسلسل الحمض النووي الريبي أحادي الخلية (scRNA-Seq) باستخدام مقاييس تحديد الخلايا وجودة التعيين، ومخطط رتبة الباركود، وتشبع التسلسل، وإسقاطات UMAP. وقد أسفر تفكيك أنسجة ثدي BALB باستخدام بروتوكول التفكيك الموضح هنا عن 16,182 خلية، مع تخصيص 97% من القراءات للخلايا، مما يشير إلى أن العينة سليمة، نظراً لتخصيص عدد قليل من القراءات للحمض النووي الريبي خارج الخلوي. وتشير النسبة المئوية الكبيرة من القراءات المسجلة خارج الخلية إلى زيادة مستويات التلوث بـ mRNA المحيط الناتج عن الخلايا الميتة أو التي في طور الموت. أما جودة التعيين فهي النسبة المئوية للمسابير التي تم تعيينها في مجموعة المسابير؛ وقد بلغت 99.1%. وكان تشبع التسلسل في مرحلة الثبات (plateauing)، مما يشير إلى تكرار الجينات المحددة مسبقاً بدلاً من تحديد جينات فريدة. يوضح مخطط رتبة الباركود تعدادات UMI مقابل الباركودات، وتظهر العينة عالية الجودة انخفاضاً واضحاً، أو ما يسمى "منحنى الركبة" (knee bend)، عند حوالي 10 آلاف من UMIs.الشكل 4A). وأخيراً، يُظهر إسقاط UMAP عدة تجمعات متميزة (الشكل 4A). تشير كل هذه المقاييس إلى جودة عالية لمكتبة تسلسل الحمض النووي الريبي أحادي الخلية (scRNA-Seq).
لمقارنة جودة هذا البروتوكول مقابل بروتوكول التفكيك التجاري الموصى به الذي يبدأ بالتثبيت لكيمياء Flex، تم تنفيذ بروتوكول التفكيك التجاري الذي يبدأ بالتثبيت جنبًا إلى جنب مع البروتوكول المذكور هنا، وتم تقييم جودة المكتبة الناتجة. استعاد بروتوكول التفكيك التجاري الذي يبدأ بالتثبيت لعينات الغدة الثديية من سلالة BALB عدد 720 خلية، مع وجود 68% من القراءات في الخلايا وجودة تعيين (mapping quality) بلغت 89.3%. وبالمثل، بدأ التشبع في الوصول إلى مرحلة الثبات، إلا أن أعداد الجينات لكل خلية كانت أقل بشكل ملحوظ مقارنة بالتفكيك الحي (4,500 جين/خلية للتفكيك الحي مقابل 1,000 جين/خلية لبروتوكول التفكيك التجاري الذي يبدأ بالتثبيت). لا يظهر مخطط ترتيب الرمز الشريطي (barcode rank plot) انحناءً مفصلياً (الشكل 4B)، ورغم وجود تجمعات متميزة، إلا أنها أقل عددًا (الشكل 4B).
تم أيضاً تقييم جودة مكتبات أنسجة الثدي التي تحتوي على أورام BALB NeuT (الشكل 4C,D). باستخدام طريقة التفكيك الحي الموصوفة هنا، تم تسلسل 18,077 خلية، حيث كانت 97% من القراءات داخل الخلايا و99.1% منها مرتبطة بمجموعة المجسات. وكان انحناء الركبة (knee bend) واضحاً (الشكل 4C)، بالإضافة إلى فصل واضح بين المجموعات (الشكل 4C). وقد حقق بروتوكول التفكيك التجاري الذي يبدأ بالتثبيت أداءً أفضل عند وجود ورم، حيث تم تسلسل 7,119 خلية، وكانت 91% من القراءات داخل الخلايا و98.6% من القراءات مرتبطة بمجموعة المجسات. وكان هناك انحناء ركبة أفضل في مخطط رتبة الباركود (الشكل 4D)، ولكن على الرغم من تشبع التسلسل، احتوت إسقاطات UMAP على عدد قليل من المجموعات المتميزة (الشكل 4D).
تتضمن مقاييس الجودة الإضافية تحديد عدد الجينات الميتوكوندرية التي تعبر عنها التجمعات الخلوية. ويعد الفصل الخلوي الجيد مؤشراً على جودة العينة، حيث تدل النسبة العالية من "القراءات داخل الخلية" (reads in cell) على سلامة العينة. ويمكن تحديد الخلايا التي تحتوي على أعداد عالية من الجينات الميتوكوندرية (والتي يرمز لها بـ ‘mt-’) وإزالتها باستخدام أدوات التجميع مفتوحة المصدر أو تلك المقدمة من الموردين. كما يمكن إجراء مقارنة مباشرة للعينات عن طريق تجميع العينات باستخدام تطبيق Cell Ranger، الذي يسمح بمقارنة معلوماتية حيوية مباشرة، أو باستخدام نص "التكامل" (integration script) في أدوات التجميع مفتوحة المصدر وتلك المقدمة من الموردين. ويتم تحديد التجمعات الخلوية من خلال الاستعلام عن علامات سلالات خلوية معروفة (على سبيل المثال، CD45/Ptprc للخلايا المناعية، وEpCAM للخلايا الظهارية، وFap أو Pdgfra للخلايا الليفية). وفي حال تعذر تحديد تجمع خلوي بواسطة علامات السلالة المعروفة، يمكن تحليل أكثر 10-15 جيناً تعبيراً باستخدام أدوات إثراء مجموعة الجينات للحصول على نظرة ثاقبة حول نوع الخلية المحتمل. وبدلاً من ذلك، يمكن الاستعلام عن الجينات الأكثر تعبيراً باستخدام أدوات أطلس الخلايا المرجعية لمعرفة التعبير في أنواع الخلايا المعروفة.
تم استبعاد الخلايا التي تحتوي على أعداد عالية من الجينات الميتوكوندرية من كل عينة، مما ترك 16,114 خلية (0.5% من الخلايا التي تحتوي على جينات ميتوكوندرية عالية) في الغدة الثديية لـ BALB و 18,024 خلية (0.3%) في BALB NeuT. أما في عينات بروتوكول التفكيك التجاري الذي يبدأ بالتثبيت أولاً، فقد احتفظت الغدة الثديية لـ BALB بـ 627 خلية (13% من الخلايا التي تحتوي على جينات ميتوكوندرية عالية)، واحتفظت BALB NeuT بـ 6,181 خلية (14%).
تم إجراء التكامل بين الغدد الثديية لـ BALB و BALB NeuT من أجل بروتوكول تفكيك الخلايا الحية الموصوف هنا، وهو موضح في الشكل 4E،F. وأظهرت مقارنة العينات وجود مجموعات خلوية متشابهة بين المكتبات (الشكل 4E، F، و الجدول 1). تم تمييز التجمعات الخلوية باستخدام علامات سلالات خلوية معروفة، وأجريت مقارنات بين العينات. شملت مجموعات الخلايا المناعية الخلايا التائية (T cells)، والخلايا البائية (B cells)، وتجمعات البلاعم (macrophages)، بينما شملت مجموعات الخلايا غير المناعية الخلايا الظهارية، والأرومات الليفية (fibroblasts)، والخلايا البطانية. وكما هو متوقع، احتوت عينة BALB NeuT على مجموعة إضافية من الخلايا الورمية (الشكل 4F). وبالنظر إلى مجموعات خلوية محددة، تبين وجود المزيد من البلاعم في عينة BALB NeuT الحاملة للورم، ولكن عدد أقل من الخلايا التائية والخلايا الظهارية غير الورمية. وأظهر تحليل scRNA-Seq وجود مجموعة مماثلة من الخلايا الظهارية المشتقة من الغدة الثديية لـ BALB ومجموعة كبيرة من الخلايا الظهارية/الورمية في نظيرتها NeuT. يظهر مخطط تقليل الأبعاد تمييزاً واضحاً بين مجموعة الخلايا الظهارية المقيمة الطبيعية في الثدي والخلايا الورمية الظهارية الخاصة بعينة BALB NeuT (الشكل 4E،F).
بعد إنشاء المجموعات الظهارية، تم تقييم الخلايا السدوية بين عينات BALB و BALB NeuT. وقد حدد تحليل جين مستقبل عامل النمو المشتق من الصفائح الدموية ألفا (Pdgfrα) الذي تعبر عنه الخلايا الليفية وجود مجموعة متميزة من الخلايا الليفية في كل من عينات BALB و BALB NeuT. في عينة BALB scRNA-Seq، شكلت الخلايا الليفية التي تعبر عن Pdgfrα نسبة 15% من الخلايا، وهي نسبة أقل نوعاً ما من تحليل قياس التدفق الخلوي الذي أظهر أن الخلايا الليفية تشكل 29% من الخلايا (الشكل 3B). وبعد تحديد البوابات لضمان الحيوية وحالة الخلية المفردة، تم تحديد الخلايا الليفية عن طريق قياس التدفق الخلوي باستخدام وسم PDGFRα (CD140a). وتدعم النتائج الملحوظة عبر العينات، بغض النظر عن طرق التحليل اللاحقة، اتساق بروتوكول الفصل هذا بمرور الوقت وعبر تجارب متعددة.
يتم تشفير بروتين CD45 بواسطة جين Ptprc، وقد كشف تسلسل الحمض النووي الريبي (RNA sequencing) للخلايا التي تعبر عن Ptprc عن وجود تجمعات لمفاوية يمكن تحديدها بوضوح داخل العينة (الشكل 4E). ولمزيد من التقييم لمجموعات الخلايا اللمفاوية، تم فحص الخلايا لتحديد مجموعات خلايا B وخلايا T باستخدام Cd3e+ أو Cd79a+ (الشكل 4E،F). كانت هذه المجموعات متميزة عند تقييم بيانات التسلسل أحادي الخلية، رغم أن تسلسل RNA أحادي الخلية (scRNA-Seq) حدد كذلك عدة تجمعات فرعية من خلايا T التي تعبر عن Cd3. وأظهرت تعدادات الخلايا المناعية الإضافية من تحليل التسلسل زيادة في البلاعم (macrophages) في عينة BALB NeuT، كما يتضح من تعبير Itgam and Adgre1 (F4/80) (الشكل 4F). ولتقييم القدرة على تحديد مجموعات الخلايا النادرة في scRNA-Seq، تم تحديد الخلايا التائية التنظيمية (regulatory T cells) من خلال تعبيرها عن Foxp3 (الشكل 4F). توجد الخلايا التائية التنظيمية في مكتبات scRNA-Seq ولكنها لم تكن وفيرة بما يكفي لتحديدها كتجمع متميز، بل تجمعت بدلاً من ذلك مع الخلايا التائية والخلايا القاتلة الطبيعية (NK cells).
أخيراً، كانت القدرة على تحديد الخلايا المتعادلة (PMNs) ضمن مكتبات scRNA-Seq مصدراً للقلق ولم تتحقق باستخدام بروتوكولات تفكيك الغدة الثديية الأخرى المتاحة تجارياً20. وباستخدام قياس التدفق الخلوي، تم تحديد حوالي 5% من الخلايا المناعية على أنها خلايا متعادلة تعبر عن Ly6G و CD11b (الشكل 3H). ولتحديد الخلايا المتعادلة ضمن مكتبات scRNA-Seq، يُوصى بإعادة التجميع (recluster) باستخدام مسارات تحليل المورد لتحديد الخلايا التي تقع تحت منحنى الركبة القياسي (standard knee bend). وقد تم تنفيذ هذه الممارسة لكل من مكتبات الغدة الثديية لـ BALB و BALB NeuT. تمت مقارنة المخططات النقطية (Dotplots) للجينات المرتبطة عادةً بالخلايا البلعمية (Ptprc, Adgre1, Mrc1) مع تلك التي تعبر عنها الخلايا المتعادلة (S100a8, Trem1, Clec4). ولم تحتوي أي من مكتبات BALB أو BALB NeuT على أعداد كبيرة من الخلايا المتعادلة (الشكل 5A,B). ومع ذلك، يبدو أن ذلك يعتمد على خلفية النموذج، حيث حملت فئران F1 NeuT ذات الخلفية BALB x PWK تجمّعاً خلوياً يعبر عن علامات الخلايا المتعادلة (الشكل 5C).
وبذلك، أتاح بروتوكول الفصل هذا توضيح أنواع الخلايا الموجودة داخل الغدد الثديية لفئران BALB وفئران BALB NeuT التي تطور أوراماً ثديية تلقائية. ونظراً لأن هذه الخلايا ذات حيوية عالية، يمكن استخدام هذه التقنية لتقييم المناعة المضادة للأورام والوظيفة المضادة لـ HER2/neu لمجموعات الخلايا المناعية المعزولة.
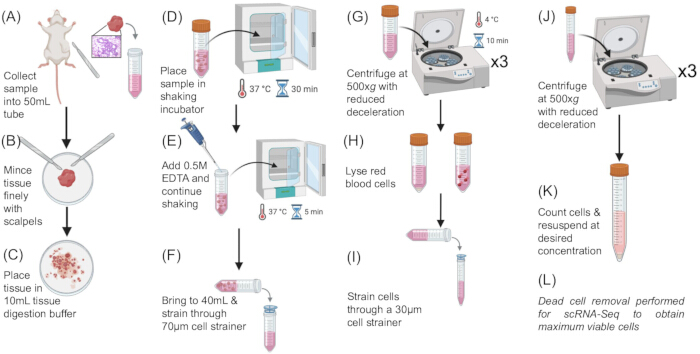
الشكل 1: سير العمل لبروتوكول تفكيك الأنسجة. (A) تم استئصال الغدد الثديية أو الأورام (B,C)، ثم فُرمت ناعماً (D)، وهُضمت عند 37 °C مع الرج في مزيج من collagenase type II و collagenase D و DNase I (E). أُضيف EDTA، واستمر الهضم لمدة 5 min إضافية. (F) أُوقف الهضم عن طريق الإكمال (Qs) إلى 40 mL باستخدام وسط RPMI المحتوي على 10% FBS (وسط الغسيل R10)، ثم رُشح المعلق عبر مرشحات 70 µm. (G) تم طرد معلقات الخلايا مركزياً عند 4 °C و 500 × g لمدة 10 min، ثم غُسلت 3 مرات بوسط غسيل RPMI. (H) تم تحلل خلايا الدم الحمراء (RBC) باستخدام محلول 10 × RBC Lysis القائم على كلوريد الأمونيوم. (I) استُخدم محلول غسيل R10 لإيقاف التحلل، ورُشحت معلقات الخلايا عبر مرشحات 30 µm. (J,K) بعد تحلل خلايا الدم الحمراء، تُغسل الخلايا ثلاث مرات إضافية قبل تقييم التركيز والحيوية. (L) إذا كانت الخلايا ستُستخدم لتوليد مكتبة scRNA-Seq، يتم إزالة الخلايا الميتة والحطام باستخدام أطقم تجارية متاحة، وفقاً لبروتوكولاتها. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
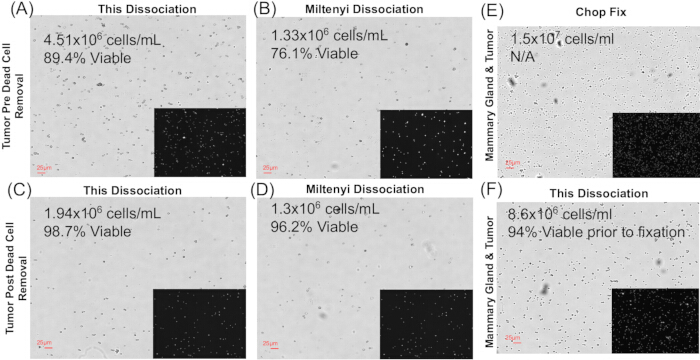
الشكل 2: مقارنة التفكيك. بيانات تعداد الخلايا وحيويتها لمقارنة بروتوكول التفكيك المذكور هنا مع بروتوكول Miltenyi المتاح تجارياً وبروتوكول تفكيك تجاري يعتمد على التثبيت أولاً وموصى به لـ scRNA-Seq. تم الحصول على تعداد الخلايا بعد التفكيك باستخدام عداد خلايا آلي مع صبغ الخلايا الميتة باستخدام acridine orange/propidium iodide (AO/PI). تم عد الخلايا وتسجيل الحيوية بعد إزالة الخلايا الميتة. (A–B) تعداد الخلايا وحيويتها مباشرة قبل إزالة الخلايا الميتة. (C–D) تعداد الخلايا وحيويتها بعد إزالة الخلايا الميتة، وهو ما يمثل العينة التي تدخل في مسار scRNA-Seq. (E–F) تعداد الخلايا وحيويتها عند مقارنة البروتوكول المذكور هنا مع بروتوكول تفكيك تجاري يعتمد على التثبيت أولاً. لم يكن من الممكن تقييم الحيوية بعد التفكيك باستخدام البروتوكول الذي يحتوي على Liberase لأن عينة النسيج كانت مثبتة قبل التفكيك. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
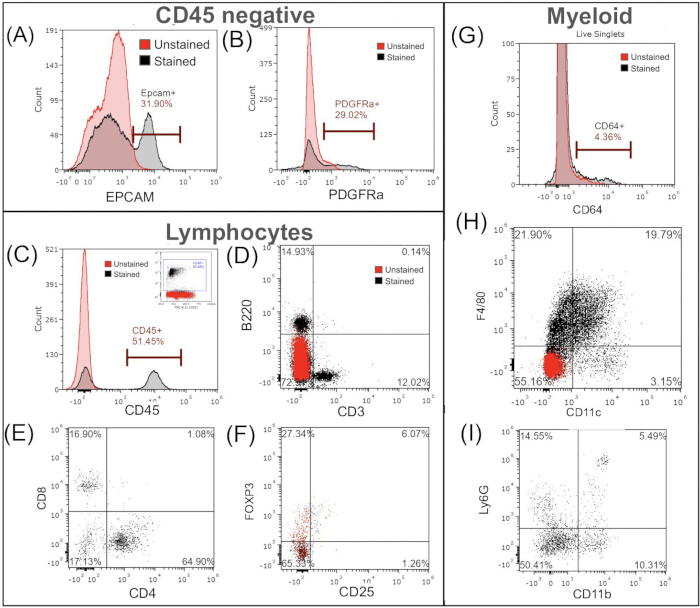
الشكل 3: تحليل قياس التدفق الخلوي للأنسجة المفككة. لضمان وجود الخلايا المناعية وحيويتها، تم تحليل عينات ممثلة من BALB و BALB NeuT. تم تحديد الخلايا الحية أولاً من خلال البوابة (gating)، ثم تم تحديد الخلايا المفردة (singlets) قبل تحديد المجموعات الفرعية. وللتأكد من استعادة الخلايا ذات الأصل الظهاري والسدوي، تم تقييمها أولاً. استُخدم EpCAM لتحديد الخلايا المشتقة من الظهارة (A)، واستُخدم PDGFRa لتحديد الخلايا الليفية (B) ولتقييم المجموعات المناعية، كانت 51% من إجمالي الخلايا إيجابية لـ CD45 في الغدة الثديية (C) وقد تم الحصول على مجموعات الخلايا البائية (B220+) والخلايا التائية (CD3+) من نسيج الثدي الفأري المفكك (D)، كما تم تحديد مجموعات CD8+ و CD4+ من خلال بوابات فرعية من نسيج الورم (E) ولتحديد ما إذا كان هذا البروتوكول يمكنه عزل المجموعات الخلوية النادرة بفعالية، (F) تم تقييم خلايا Treg في نسيج الورم باستخدام تعبير Foxp3+. تم ذلك عن طريق تحديد بوابة لمجموعة CD3+ و CD4+ أولاً، ومن ثم تحديد الخلايا التي تعبر عن Foxp3+ و CD25+ ضمن تلك المجموعة (حوالي 6%). (G) تقييم البلاعم CD64+ من نسيج الورم. (H) تم تحليل خلايا CD11b+ بشكل أكبر للكشف عن تعبير F4/80 و CD11c، حيث تم تحديد خلايا F4/80− CD11c+ كخلايا شجرية. (I) تم تحديد الخلايا المتعادلة كخلايا تعبر عن CD45+ و Ly6G+ و CD11b+، ولكنها كانت F4/80−. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
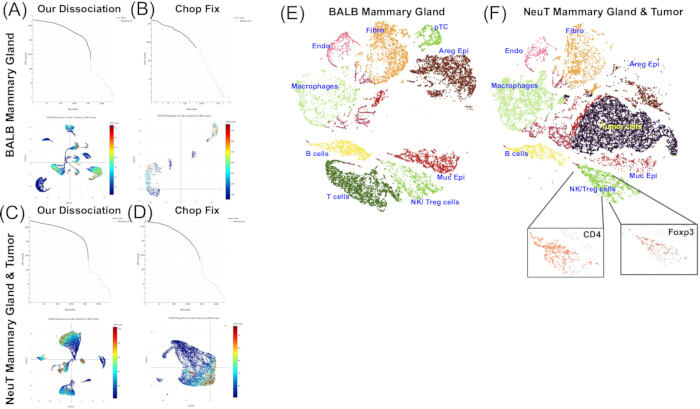
الشكل 4تقييم مكتبات تسلسل الحمض النووي الريبي أحادي الخلية (scRNA-Seq). استُخدمت عينات مثبتة لإنشاء مكتبات تسلسل الحمض النووي الريبوزي أحادي الخلية (scRNA-Seq)؛ إما عن طريق بروتوكول تفكيك الخلايا الحية الموصوف هنا، متبوعًا بالتثبيت كما ورد في هذه المخطوطة، أو بروتوكول تفكيك الخلايا الموصى به تجاريًا والذي يبدأ بالتثبيت أولاً.A) ضبط الجودة لمكتبة تسلسل الحمض النووي الريبي أحادي الخلية (scRNA-Seq) لخلايا الغدة الثديية المفككة الحية من فئران BALB. تم تسلسل 16,182 خلية، حيث تم تعيين 97.1% من القراءات بثقة داخل الخلايا، و98.8% تم تعيينها بثقة لمجموعة المجسات المصفاة. تظهر مخططات انحناء الركبة (Knee bend plots) في الأعلى، وإسقاطات UMAP في الأسفل. يشير انحناء الركبة الحاد والعناقيد الخلوية المتميزة إلى مكتبات عالية الجودة.B) يظهر تقييم الجودة لبروتوكول تفكك تجاري يعتمد على التثبيت أولاً لمكتبة تسلسل الحمض النووي الريبي أحادي الخلية (scRNA-Seq) للغدة الثديية في فئران BALB غياباً لمنحنى الركبة وعدد خلايا قليلاً (العدد = 720).كربونتم إنشاء مكتبة تسلسل الحمض النووي الريبي أحادي الخلية (scRNA-Seq) لغدة الثدي في فئران BALB NeuT وفقاً للبروتوكول الموضح هنا. تم تسلسل 18,077 خلية، حيث تم تعيين 97% من القراءات للخلايا و98.9% لمجموعة المجسات المفلترة. ويظهر انحناء الركبة الحاد، إلى جانب العناقيد المتميزة، جودة جيدة، بينما تظهر مكتبة BALB NeuT التي استُخدم فيها بروتوكول تفكيك تجاري يعتمد على التثبيت أولاً (د) يظهر انحناءً ضعيفاً في منحنى "knee bend"، ولكن مع تجمعات خلوية غير متمايزة عبر الخلايا المتسلسلة البالغ عددها 7,119 خلية. وبعد إنشاء المكتبة، استُخدم برنامج Cell Ranger لدمج مكتبات الغدة الثديية لكل من BALB و BALB NeuT، متبوعاً بتجميع K-Means في برنامج Loupe Cell Browser لإجراء مقارنة مباشرة. وتحدد عشرة تجمعات فريدة الخلايا التي تشكل الغدة الثديية لـ BALB/c، كما هو موضح في مخططات T-SNE (هـ، و). في الفأر المعدل وراثياً NeuT (ف) الغدة الثديية، كان هناك مجتمع إضافي من الخلايا الورمية. وضمن التجمع اللمفاوي، CD4- و CD8aتتوزع الخلايا المُعبرة في جميع أنحاء [العينة/النسيج]. Cd4 يظهر التعبير في الشكل المدرج. لم تكن الخلايا التائية التنظيمية، التي يتم تحديدها من خلال تعبير Foxp3، عديدة بما يكفي لتشكيل عنقود منفصل، بل تجمعت مع الخلايا التائية، كما هو موضح في مخطط الميزات المظلل. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
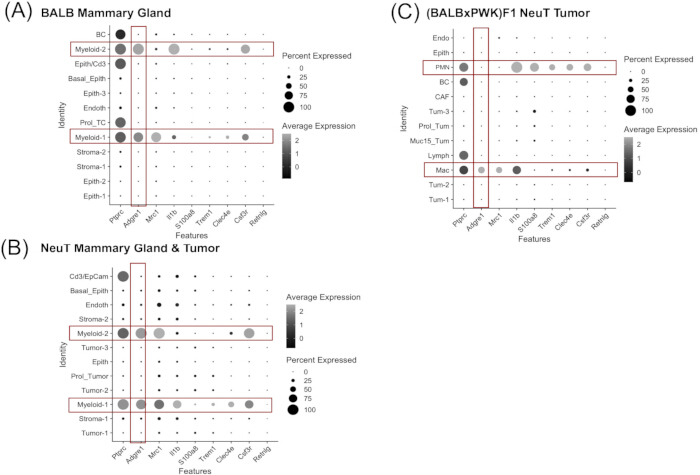
الشكل 5تحديد الخلايا المتعادلة (PMN). تُعرف الخلايا متعددة الأشكال النوى (PMN) بصعوبة تحديدها في مكتبات تسلسل الحمض النووي الريبي أحادي الخلية (scRNA-Seq) نظراً لانخفاض مستويات نسخ الحمض النووي الريبي فيها وضعف... Ly6g التعبير. يمكن تحديد الخلايا متعددة الأشكال النووية (PMN) في مكتبات تسلسل الحمض النووي الريبي أحادي الخلية (scRNA-Seq) باستخدام الأمر ‘count’ في برنامج Cell Ranger، مع إدراج خيار ‘force cell = 8000’ في سطر الأوامر. وقد أُجري هذا التحليل لكل من BALB (A) و BALB NeuT (Bمكتبات الغدة الثديية، ولكن عددًا قليلاً من الخلايا عبر عنها عن الجينات النوعية للخلايا المتعادلة. كما عبرت جميع تجمعات الخلايا النخاعية في BALB وBALB NeuT أيضًا عن Adgre1 (F4/80) و Mrc1 (CD206). وتعبر مجموعة قليلة جداً من الخلايا في المجموعات النخاعية عن الجينات النوعية للخلايا متعددة الأشكال النووية. S100a8, Trem1، و Clec4eومع ذلك، فإن هذه النتيجة تعود إلى خلفية BALB في النموذج، حيث إن مكتبات scRNA-Seq التي تم تحضيرها باستخدام تقنية التفكيك من إناث الفئران (BALBxPWK)F1 NeuT، كما هو موصوف هنا (س)، وبدون أمر خلية القوة، لوحظ أنها تحتوي على مجموعة من الخلايا التي تعبر عن جينات خاصة بالكريات البيضاء متعددة النوى ولكن ليس Adgre1ويبرز هذا أن بروتوكول الفصل هذا يمكنه بالفعل استخلاص الخلايا متعددة الأشكال النووية (PMNs) بالإضافة إلى مجموعات أخرى من الخلايا النخاعية. وتوضح المربعات المستطيلة الحمراء العناقيد التي تعبر عن Adgre1. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| ورم BALB NeuT | قياس التدفق الخلوي | تحديد تتابع الحمض النووي الريبي أحادي الخلية (scRNA-Seq) |
| CD3 / الخلايا اللمفاوية | 6% من إجمالي الخلايا (12% من الخلايا الموجبة لـ CD45) | 7% من إجمالي الخلايا |
| CD4 / Cd4 | 3.9% من إجمالي الخلايا (65% من الخلايا الموجبة لـ CD45+CD3+) | ٤٪ من إجمالي الخلايا |
| CD8 / Cd8a | 1% من إجمالي الخلايا (17% من خلايا CD45+CD3+) | 0.9% من إجمالي الخلايا |
| Foxp3 / Foxp3 | 0.8% من إجمالي المبيعات (33% من خلايا +CD3+CD4) | 0.7% من إجمالي الخلايا |
| F4/80 / Adgre1 | ٢٠٪ من إجمالي الخلايا | 16% من إجمالي الخلايا |
| CD64 / Fcgr1 | نقل النيوكليوتيدات (NT) | 14% من إجمالي الخلايا |
| الخلايا متعددة النوى/الخلايا المتعادلة | %2 من إجمالي الخلايا (%5 من خلايا CD45+) | 0.05% من إجمالي الخلايا |
| PDGFRa (CD140a) / السدى | 29% من إجمالي الخلايا | 10% من إجمالي الخلايا |
| EpCAM / ظهارية | 32% من إجمالي الخلايا | 54% من إجمالي الخلايا |
| NT، غير مختبر |
الجدول 1: مقارنة لنسب الخلايا التي تم الحصول عليها من بروتوكول التفكيك هذا باستخدام تقنيات لاحقة، بما في ذلك تسلسل RNA للخلية الواحدة وقياس التدفق الخلوي.
المناقشة
ينتج بروتوكول الفصل هذا بشكل مستمر معلقات من خلايا مفردة تتكون من مجموعات تمثل النسيج الأصلي. ومن أجل عزل أنواع خلوية ممثلة - بما في ذلك الخلايا الليفية الأكبر والخلايا الجذعية الدهنية - من نسيج الثدي، تم استخدام قوة طرد مركزي تبلغ 500 x g14,21,22. ويتم الحفاظ على الحيوية والحواتم السطحية للخلايا بشكل موثوق عبر أنواع خلوية متعددة، بما في ذلك المجموعات المناعية والظهارية والسدوية. ومن المزايا اللوجستية لبروتوكول الفصل هذا هو الوقت القصير نسبياً المطلوب للانتقال من جمع النسيج الأولي إلى الحصول على معلق خلوي نظيف جاهز لمزيد من المعالجة، دون الحاجة إلى آلات متخصصة. وبشكل عام، يستغرق سير العمل هذا حوالي ثلاث ساعات لإكماله من البداية إلى النهاية، وهي ميزة مقارنة ببروتوكولات الفصل الإنزيمية المماثلة التي قد تتطلب تعريض العينة للإنزيم طوال الليل. تم تطوير هذا البروتوكول واستخدامه في هذا المختبر ومختبرات أخرى بالتنسيق الملحق منذ عام 2023. وفي الأشهر الستة الماضية وحدها، نفذ المختبر هذا البروتوكول 37 مرة بنتائج مماثلة، وقد أتمه جميع المتدربين من مختلف المستويات بنجاح. وبالإضافة إلى قياس التدفق الخلوي وتوليد مكتبات scRNA-Seq، استُخدم البروتوكول لعزل الخلايا اللمفاوية المرتشحة للورم (TIL) والبلعميات المرتبطة بالورم (TAM) لإجراء تحليل وظيفي ex vivo. وبينما تظهر النتائج أن بروتوكول الفصل يمكنه تحديد المجموعات الخلوية الرئيسية، فمن المهم ملاحظة أن قياس التدفق الخلوي و scRNA-Seq يختلفان بشكل جذري؛ حيث صُمم قياس التدفق الخلوي لدراسة الخلايا من حيث تعبير علامات متعددة على مستوى الخلية المفردة، ويستخدم تقنيات التصنيف (gating) والتصنيف الفرعي (sub-gating) لتحقيق هذا الهدف. وفي المقابل، صُمم scRNA-Seq لتحديد التغيرات في التعبير الجيني عبر مجموعة من الخلايا دون الحاجة إلى التصنيف أو التصنيف الفرعي.
تضمنت عملية استكشاف أخطاء البروتوكول وإصلاحها ما يلي: 1) الهضم غير المكتمل: يتأثر هضم عينات الأنسجة بشدة بالتفكك الفيزيائي. قم بفرم النسيج حتى يصبح شبيهاً بالعجينة، مع فرده لملاحظة أحجام قطع النسيج. تستغرق هذه الخطوة وقتاً أطول مما هو متوقع غالباً. يؤدي التفكك غير المكتمل إلى انخفاض عدد الخلايا السدوية والظهارية مقارنة بالخلايا المناعية. 2) الحيوية المنخفضة: تتأثر حيوية الخلايا بوقت الهضم وضمان الحفاظ على نسبة 2:1 من collagenase type II إلى collagenase D. سيؤدي نقص collagenase type II إلى انخفاض كبير في حيوية الخلايا. علاوة على ذلك، إذا كانت حيوية العينة تتراوح بين 70–85%، فإن أنظمة إزالة الخلايا الميتة المتاحة تجارياً تكون فعالة في تحسين الحيوية ويوصى بها قبل تقديم العينات لإنشاء مكتبة scRNA-Seq. 3) كثرة حطام الخلايا: غالباً ما يكون حطام الخلايا أثراً جانبياً للتفكك الفيزيائي والهضم. يتم إزالة الحطام بشكل أكثر فعالية باستخدام وسط تدرج الكثافة أو محلول إزالة الحطام المتاح تجارياً والذي يتميز بكثافة منخفضة بشكل كبير. 4) ضعف استعادة الراسب: يتأثر ضعف استعادة العينة بشكل أساسي بكمية النسيج الأولية. تم تحسين هذا البروتوكول لغدتين ثدييتين أو أورام متوسطة الحجم تتراوح بين 10 و 20 mg. إذا كان حجم العينة الأولية يحتوي على أقل من غدة ثديية واحدة أو ورم أصغر من ~200 mm3، فسيكون إنتاج الخلايا منخفضاً. إذا كانت أحجام الأنسجة صغيرة، يمكن تقليل الأحجام بنسبة 50%. وبالمثل، إذا كانت هناك أورام كبيرة أو غدد ثديية متعددة (أكثر من 4 غدد ثديية أو أورام أكبر من ~25 mg)، يمكن زيادة الأحجام إلى 1.5 ×. يجب تقسيم العينات التي يزيد حجمها عن ~25 mg من أجل المعالجة. 5) رداءة جودة scRNA-Seq: تعتمد جودة مكتبات scRNA-Seq بشكل شبه كامل على جودة العينة الأصلية. عند العمل مع أنسجة الأورام، يعد توقيت تكوين خرز الجل في المستحلب (GEM) الأولي وتوليد cDNA أمراً ضرورياً. لهذا السبب، فإن وجود بروتوكول ينتقل طبيعياً إلى التثبيت الفوري للـ RNA، مثل نظام كيمياء الخلية الواحدة للـ RNA المثبت القائم على المسبار، يزيل عامل الوقت كمتغير يؤثر على جودة العينة. ومع ذلك، فإن تقييم جودة الـ RNA قبل الدخول في مسار scRNA-Seq يضمن أن تكون المكتبات الناتجة غنية بالمعلومات. 6) عناقيد خلوية أقل من المتوقع: عندما تظهر نتائج scRNA-Seq مستويات منخفضة من التعبير الجيني في عدد قليل من العناقيد الفريدة، يمكن تسلسل المكتبات مرة أخرى لزيادة عدد القراءات (عمق التسلسل). بالإضافة إلى ذلك، إذا كانت الدراسة تبحث فقط عن الخلايا المناعية، فإن تنقية مجموعة CD45+ قبل إنشاء المكتبة سيزيد من حساسية التسلسل.
واجه بروتوكول التثبيت والتفكيك التجاري المشار إليه أعلاه تحديات عند معالجة الأنسجة الدهنية. ففي المقام الأول، كانت الأنسجة الدهنية المثبتة طافية ويصعب تفكيكها وترشيحها بفعالية. لهذا السبب، لا يُنصح باستخدام الأنسجة الدهنية مع بروتوكول التثبيت والتفكيك التجاري المستخدم هنا. كما أن تثبيت الأنسجة قبل تفكيكها إلى معلق من الخلايا المفردة قد ألغى خطوات مراقبة الجودة، مثل قياسات الحيوية وعملية التفكيك بعد التثبيت. وقد جعل ذلك من الصعب تقدير جودة العينة قبل تقديمها لتحليل scRNA-seq اللاحق، وهي خطوة ضرورية في عملية تفكيك الأنسجة. ويمكن أن يؤدي تثبيت الأنسجة لتحليل scRNA-Seq اللاحق إلى تحلل RNA. ويمكن تقييم جودة RNA من خلال فحص طول قراءة النوكليوتيدات (nt) في عينات الخلايا المثبتة؛ فكلما ارتفعت نسبة العينة التي تحتوي على قراءات >200 nt، كانت الجودة أفضل. وتتمتع العينات ذات درجة سلامة RNA بوجود >30% من العينة بقراءات >200 nt، ومن ثم يمكن استخدامها لإنشاء مكتبات scRNA-Seq بثقة عالية. وقد أظهرت العينات المثبتة من الغدة الثديية لسلالة BALB وأنسجة أورام BALB NeuT الواردة هنا أن 83% و82% من القراءات كانت >200 nt، على التوالي.
تشكل الأنسجة ذات المحتوى العالي من الدهون، مثل الغدد الثديية، مشكلة لأن الخلايا الدهنية يمكن أن تتداخل مع إنتاج تحضيرات خلوية عالية الجودة. تظل معظم الخلايا الدهنية في الجزء العلوي من الأنبوب المخروطي، ويمكن إزالتها تحت تفريغ هوائي أو عن طريق سكب المادة الطافية. وقد وجدنا أن الغدد الثديية شديدة الدهون، مثل تلك المستمدة من إناث ذات خلفية سلالة New Zealand Obese (NZO)، تتطلب خطوة إضافية: وهي مسح الجزء العلوي من الأنبوب بمسحة مختبرية نظيفة وخالية من الوبر لتسهيل إزالة الخلايا الدهنية، تليها خطوات غسيل إضافية لإزالة الدهون تماماً. كما تميل الأنسجة الثديية إلى إعطاء عوائد خلوية أقل. وللتخفيف من هذه المشكلة، يتم تجميع العينات كلما أمكن ذلك لزيادة عائد الخلايا. أما بالنسبة للأورام الصلبة جداً، فإن الفرم المناسب يعد أمراً أساسياً، حيث يقلل مساحة السطح التي يجب على إنزيمات الكولاجيناز هضمها ضمن الوقت اللازم لإنتاج خلايا مفردة عالية الحيوية.
ومع ذلك، فإن هذا البروتوكول له قيوده؛ حيث يمثل الهضم الكامل للخلايا الظهارية لتحويلها إلى معلق خلوي مفرد تحدياً عند محاولة الحصول على خليط خلوي غير متجانس. وتكون أورام الثدي في فئران BALB NeuT صلبة بشكل عام، مع وجود محفظة ورمية ومكون سدوّي قوي. وفي المقابل، تتطلب عملية جمع الخلايا المناعية المرتشحة تعريضاً محدوداً للإنزيم، إذ يمكن أن يؤدي التعرض المفرط إلى تغيير حالتها المظهرية. وبناءً على ذلك، ولجمع الخلايا الورمية والسدوّية، يجب إيجاد حل وسط للحفاظ على جودة هذه المجموعة المتنوعة من أنواع الخلايا، بما في ذلك الخلايا المتعادلة المرتشحة. لذا، قد تكون نسب الخلايا الظهارية والسدوّية التي يتم الحصول عليها بواسطة هذا البروتوكول أقل من النسب الممثلة فعلياً في النسيج الأصلي. وقد تم تحسين هذا البروتوكول من خلال تجارب عديدة لتقييم نسب إنزيم الكولاجيناز وأوقات التفكيك لتحديد أفضل الممارسات لجمع عينة غير متجانسة عالية الحيوية من خلايا عالية الجودة. وباستخدام هذا البروتوكول، تشمل التوجهات المستقبلية إجراء تحليل وظيفي ex vivo للخلايا المناعية المرتشحة أثناء بداية وتطور أورام الثدي لتحديد النوافذ الزمنية المناسبة للعلاج.
الإفصاحات
ليس لدى المؤلفين أي تضارب في المصالح للإفصاح عنه.
شكر وتقدير
تم الحصول على البيانات الواردة هنا، جزئياً، باستخدام أجهزة في مركز الجينوم (RRID: SCR_012406)، وبدعم من مكتب الأبحاث في جامعة ولاية ميشيغان. &؛ ابتكار.
تم تمويل هذا العمل من خلال المنحة CA278818.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| RPMI | Gibco | 11875-093 | |
| دي إن إيه ناز (DNAse) | Invitrogen | 18047019 | |
| كولاجيناز د (Collagenase D) | سيجما | 11088866001 | |
| كولاجيناز II | Worthington Biochemical | LS004177 | |
| مصل جنين البقر | VWR | 97068-085 | |
| محلول منظم من الفوسفات الملحيم بتركيز 10x (10x PBS) | Gibco | 70011-044 | |
| أزيد الصوديوم | VWR | 0639-250G | |
| مصفاة MACS Smart Strainer، 70 µم | Miltenyi Biotec | 130-110-916 | |
| مصفاة MACS Smart Strainer، 30 µم | Miltenyi Biotec | 130-110-915 | |
| إيديتا (EDTA) | Millipore | 324506-100مل | |
| محلول تحلل كريات الدم الحمراء بتركيز 10x | eBioscience/Invitrogen | 00-4300-54 | |
| طقم تثبيت ونفاذية Foxp3/عامل النسخ | eBioscience/Invitrogen | 00-5523-00 | |
| محلول صبغ بريليانت المنظم | Invitrogen | 00-4409-42 | |
| طقم إزالة الخلايا الميتة Mojosort | Biolegend | 580157 | |
| محلول موجو-سورت المنظم (5x) | Biolegend | 480017 | |
| طقم Quick-RNA Miniprep Plus | Zymo Research | R1057 | |
| طقم تفكيك الأورام، للفئران | Miltenyi Biotec | 130-096-730 | |
| مستقبل عامل النمو المشتق من الصفائح الدموية (PDGFR)α PerCP-eFluor710 | Invitrogen | 46-1401-80 | |
| Epcam eF450 | Invitrogen | 48-5791-82 | |
| CD11c APC | Biolegend | 117310 | |
| CD11b AF700 | Invitrogen | 56-0112-82 | |
| صبغة حيوية قابلة للتثبيت eF780 | Invitrogen | 65-0865-14 | |
| B220/CD45R AF488 | Biolegend | 103225 | |
| CD3 PE-Cy7 | Invitrogen | 25-0031-82 | |
| CD49b PerCP-eFluor710 | Invitrogen | 46-5971-82 | |
| CD8a BV480 | Invitrogen | 414-0081-80 | |
| CD4 SB600 | Invitrogen | 63-0041-82 | |
| CD45 BV711 | Invitrogen | 407-0451-80 | |
| تنقية الخلايا بـ FOXP3 باستخدام الكروماتوغرافيا المتقاربة (APC) | Invitrogen | 17-5773-82 | |
| Ly6G APC | Invitrogen | 17-5931-82 | |
| Ly6C PECy7 | Invitrogen | 25-5932-82 | |
| CD64 PerCP-eFluor710 | 46-0641-80 | ||
| TruStain | Biolegend | 101320 | |
| طقم كواشف التعبير الجيني GEM-X Flex من 10x Genomics | 10x Genomics | (https://www.10xgenomics.com/blog/answering-your-questions-about-single-cell-analysis-in607 clinical-ffpe-samples);1000781 | |
| جهاز قياس التدفق الخلوي Attune NxT | Thermo Fisher Scientific | تُستخدم لجمع بيانات قياس التدفق الخلوي باستخدام قنوات الليزر الحمراء والزرقاء والبنفسجية. | |
| FCS Express | برمجيات De Novo | يُستخدم لتحليل بيانات قياس التدفق الخلوي. | |
| طقم تفكيك الأورام من Miltenyi | طقم تجاري لتفكيك الأورام | ||
| طقم Miltenyi / بروتوكول Miltenyi | الطقم التجاري" أو "طقم المرجع | ||
| إنزيم الليبيراز (Liberase) | مزيج تجاري من الثرموليسين والكولاجيناز | ||
| تثبيت التقطيع | بروتوكول تجاري للتفكيك بعد التثبيت أولاً | ||
| نظام الكيمياء المرن / نظام الكيمياء المرن | كيمياء الخلية الواحدة للحمض النووي الريبي (RNA) المُثبّت القائمة على المسبارات | ||
| Seurat | (https://satijalab.org/seurat/ | أدوات تجميع البيانات مفتوحة المصدر والتجارية | |
| Cell Ranger | أدوات التجميع مفتوحة المصدر والتجارية | ||
| متصفح خلايا Loupe | أدوات التجميع مفتوحة المصدر والتجارية | ||
| EnrichR | <رابط تشعبي="(https://maayanlab.cloud/Enrichr/)">(https://maayanlab.cloud/Enrichr/) | أدوات إثراء مجموعات الجينات وأطالس الخلايا المرجعية | |
| تابولا موريس (Tabula Muris) | https://tabula400 muris.sf.czbiohub.org/visualizations | أدوات إثراء مجموعة الجينات وأطلس الخلايا المرجعي | |
| تابولا سابينس (Tabula Sapiens) | <رابط التشعبي ="https://tabula-sapiens.sf.czbiohub.org/">https://tabula-sapiens.sf.czbiohub.org/ | أدوات إثراء مجموعة الجينات وأطلس الخلايا المرجعي | |
| جهاز Cellometer K2" الجهاز و "أكريدين البرتقالي / يوديد البروبيديوم (AOPI)" | جهاز آلي لعد الخلايا مع صبغ الحيوية باستخدام الأكريدين برتقالي/يوديد البروبيديوم (AO/PI) | ||
| مناديل Kimwipe | منديل مختبري خالٍ من الوبر | ||
| STEMCELL Technologies | وسط ذو تدرج في الكثافة (على سبيل المثال، وسط من نوع Ficoll أو Percoll) | ||
| فيكول/بيركول (Ficoll/Percoll) | شفرات مشرط رقم 10 | ||
| مشرطين مقاس 10 | |||
| جهاز Cellometer K2 + كاشف AOPI | عداد خلايا آلي مع صبغ الحيوية باستخدام الأكريدين برتقالي/يوديد البروبيديوم (AO/PI) | ||
| STEMCELL Technologies | الخلايا الجذعية تكنولوجيز، www.stemcell.com، 2018 | ||
| فيكول/بيركول (Ficoll/Percoll) | وسط تدرج الكثافة | ||
| #10 مشارط جراحية | شفرة مشرط جراحي | ||
| طقم تثبيت ونفاذية Foxp3/عامل النسخ | محلول متاح تجارياً يسمح بالصبغ داخل النواة |
المراجع
- Jacob JB, et al. Identification of actionable targets for breast cancer intervention using a diversity outbred mouse model. iScience. 2023;26(4):106320. doi:10.1016/j.isci.2023.106320.
- Jacob J, et al. Activity of DNA vaccines encoding self or heterologous HER-2/neu in HER-2 or neu transgenic mice. Cell Immunol. 2006;240(2):96–106.
- Radkevich-Brown O, Jacob J, Kershaw M, Wei WZ. Genetic regulation of the response to HER-2 DNA vaccination in human HER-2 transgenic mice. Cancer Res. 2009;69(1):212–8.
- Lee SH, et al. Activation function 1 of progesterone receptor is required for mammary development and regulation of RANKL during pregnancy. Sci Rep. 2022;12(1):12286. doi:10.1038/s41598-022-16289-x.
- Autengruber A, et al. Impact of enzymatic tissue disintegration on the level of surface molecule expression and immune cell function. Eur J Microbiol Immunol (Bp). 2012;2(2):112–20.
- Bondonese A, et al. Impact of enzymatic digestion on single cell suspension yield from peripheral human lung tissue. Cytometry A. 2023;103(10):777–85.
- Jankelow A, et al. Recent advancements in tissue dissociation techniques for cell manufacturing single-cell analysis and downstream processing. Stem Cells Transl Med. 2025;14(11):szaf055. doi:10.1093/stcltm/szaf055.
- Lombardo JA, et al. Microfluidic platform accelerates tissue processing into single cells for molecular analysis and primary culture models. Nat Commun. 2021;12(1):2858. doi:10.1038/s41467-021-23238-1.
- Sun H, Xu X, Deng C. Preparation of single epithelial cells suspension from mouse mammary glands. Bio Protoc. 2020;10(4):e3530. doi:10.21769/BioProtoc.3530.
- Rodriguez de la Fuente L, Law AMK, Gallego-Ortega D, Valdes-Mora F. Tumor dissociation of highly viable cell suspensions for single-cell omic analyses in mouse models of breast cancer. STAR Protoc. 2021;2(4):100841. doi:10.1016/j.xpro.2021.100841.
- Prater M, Shehata M, Watson CJ, Stingl J. Enzymatic dissociation, flow cytometric analysis, and culture of normal mouse mammary tissue. Methods Mol Biol. 2013;946:395–409.
- Burl RB, et al. Deconstructing adipogenesis induced by β3-adrenergic receptor activation with single-cell expression profiling. Cell Metab. 2018;28(2):300–9.e4.
- Rondini EA, et al. Single cell functional genomics reveals plasticity of subcutaneous white adipose tissue during early postnatal development. Mol Metab. 2021;53:101307. doi:10.1016/j.molmet.2021.101307.
- Sharifian Gh M, Norouzi F. Guidelines for an optimized differential centrifugation of cells. Biochem Biophys Rep. 2023;36:101585. doi:10.1016/j.bbrep.2023.101585.
- Pohlmann PR, Mayer IA, Mernaugh R. Resistance to trastuzumab in breast cancer. Clin Cancer Res. 2009;15(24):7479–91.
- Gajria D, Chandarlapaty S. HER2-amplified breast cancer: mechanisms of trastuzumab resistance and novel targeted therapies. Expert Rev Anticancer Ther. 2011;11(2):263–75.
- Swain SM, et al. Pertuzumab, trastuzumab, and docetaxel for HER2-positive metastatic breast cancer (CLEOPATRA): end-of-study results from a double-blind, randomised, placebo-controlled, phase 3 study. Lancet Oncol. 2020;21(4):519–30.
- Swain SM, Shastry M, Hamilton E. Targeting HER2-positive breast cancer: advances and future directions. Nat Rev Drug Discov. 2023;22(2):101–26.
- Boggio K, et al. Interleukin 12-mediated prevention of spontaneous mammary adenocarcinomas in two lines of HER-2/neu transgenic mice. J Exp Med. 1998;188(3):589–96.
- Gsell L, et al. Multi-cellular phenotypic dynamics during the progression of an immunocompetent breast cancer model. iScience. 2025;28(11):113808. doi:10.1016/j.isci.2025.113808.
- Kilroy G, et al. Isolation of murine adipose-derived stromal/stem cells for adipogenic differentiation or flow cytometry-based analysis. Methods Mol Biol. 2018;1773:137–46.
- Orr JS, Kennedy AJ, Hasty AH. Isolation of adipose tissue immune cells. J Vis Exp. 2013;(75):e50707. doi:10.3791/50707.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً