تعد نماذج الفئران أدوات أساسية في تعزيز فهمنا للتطور الجنيني. نصف هنا بروتوكولاً لصبغ البروتينات والنسخ في أجنة الفئران الكاملة والمثبتة، وكيفية تحليل الصبغ الناتج كمياً في ثلاثة أبعاد. تتيح هذه التقنيات تصور وتحليل أنواع الخلايا والعمليات التنموية الرئيسية.
مقالة منهجية
طرق محسنة لاستقصاء التعبير البروتيني والنسخي التنموي في أجنة الفئران الكاملة*
34 مشاهدة
⸱
سبتمبر 11, 2026
في هذه المقالة
ملخص
الملخص
لقد لعبت نماذج الفئران دوراً فعالاً في تعزيز فهمنا للتطور الجنيني. ويُعد تحليل تعبير البروتينات والنواتج النسخية وتحديد تموضعها داخل الأجنة أمراً بالغ الأهمية لتوضيح الآليات الخلوية والجزيئية التي يقوم عليها التطور والمرض. ومع ذلك، فإن التقنيات التقليدية المستخدمة لتحليل النواتج النسخية والبروتينات في أجنة الفئران محدودة؛ إذ يسمح التهجين الموضعي in situ للحمض النووي الريبي (RNA) بصبغ النواتج النسخية في العينات الكاملة، ولكنه يفتقر إلى القدرة على التعددية (multiplexing). وفي المقابل، تتيح عملية تقطيع الأجنة صبغ أهداف متعددة، ولكن في بُعدين (2D) فقط. ومؤخراً، طُبقت تقنيات مثل RNAscope والصبغ المناعي الفلوري على أجنة كاملة، مما سمح بتعددية الأهداف في ثلاثة أبعاد (3D). وتمكن هذه الطرق من رسم خرائط للتفاعلات والمسارات وأنواع الخلايا الرئيسية الضرورية للتطور الجنيني دون القيود التي تفرضها التقنيات التقليدية.
نصف هنا طرقاً محسنة لصبغ أجنة الفئران المثبتة في اليوم الجنيني (E) 8.5 و E9.5 بكامل حجمها باستخدام تقنية RNAscope أو التألق المناعي. تتيح كلتا التقنيتين الكشف المتعدد لما يصل إلى 4 أهداف في آن واحد في جنين واحد. كما نقدم طريقة للجمع بين صبغ التألق المناعي وتقنية RNAscope في الجنين نفسه لتصور التفاعل بين البروتينات والنساخ أثناء التطور. علاوة على ذلك، نصف مسار عمل للتصوير البؤري والتحليل ثلاثي الأبعاد لتعبير الأهداف عبر الجنين بأكمله وضمن أنواع خلوية تطورية محددة باستخدام برنامج Zeiss Arivis Pro. تتيح هذه الطرق مجتمعة تحليلاً شاملاً لأهداف البروتينات والنساخ المتعددة في شكل ثلاثي الأبعاد، مما يوفر نظاماً قوياً لتشريح التفاعلات الخلوية والجزيئية في المراحل المبكرة والمتوسطة من تكوين الجنين.
المقدمة
لقد كانت نماذج الفئران أساسية في دفع عجلة التقدم في علم الأحياء النمائي، حيث أتاحت فهم العمليات النمائية ذات الصلة بالبشر in vivo نظراً للتشابه بين نمو الفئران والبشر والقدرة على تعديل التعبير الجيني باستخدام تقنيات رئيسية مثل Cre-LoxP أو CRISPR/Cas91,2. ويُحفظ حوالي 90% من المناطق الجينومية بين الفئران والبشر3، كما تشترك الفئران والبشر في العديد من العمليات النمائية. فعلى سبيل المثال، تتبع كل من الفئران والبشر جدولاً زمنياً مماثلاً للتخلق الجنيني، بما في ذلك تكوين الزيجوت الذي يتطور إلى بلاستوسيت (الكيسة الأرومية)، يليه الانغراس والتعضي (تكون الطبقات الجرثومية)4. علاوة على ذلك، يتشابه نمو معظم الأعضاء بين الفئران والبشر؛ فعلى سبيل المثال، يتبع كل من قلب الإنسان والفأر تسلسلاً مماثلاً من الالتواء القلبي، وانقسام الأذين والبطينين، وتكوين الصمامات، وتكوين مسار التدفق الخارجي لتشكيل قلب رباعي الحجرات5. وبالتالي، فإن قلوب الفئران والبشر، سواء في مرحلة النمو أو بعد اكتمال نموها، تمتلك تشابهاً هيكلياً كبيراً6,7.
من أجل استقصاء العمليات التي تحدث في التطور الطبيعي والمرضي، تم تطوير تقنيات متعددة تسمح بتصوير البروتينات والنسخ الرئيسية مكانياً. وتشمل هذه التقنيات صبغ التألق المناعي والتهجين الموضعي للـ RNA in situ .
وُصف التهجين الموضعي in situ للحمض النووي الريبوزي (RNA) لأول مرة بواسطة Gall وPardue8، وبواسطة John وBrinstall وJones في عام 19699، وبواسطة Buongiorno-Nardelli وAmaldi10 في عام 1970. وتُستخدم هذه التقنية لفحص تعبير النسخ في الأنسجة8. وباختصار، يتم اختيار مسابير تحتوي على تسلسل مكمل من RNA للهدف المطلوب وتوسيمها بعلامات للكشف. وتشمل هذه العلامات الوسوم المشعة، أو البيوتين، أو الديجوكسيجين. يتم نفاذ العينات المثبتة للسماح باختراق المسابير، ثم يتم تهجين المسبار مع النسيج. بعد ذلك، يمكن إما تصوير الأنسجة مباشرة إذا كانت موسومة إشعاعياً، أو تصور العلامات باستخدام أجسام مضادة مقترنة بالفوسفاتاز القلوي أو بصبغة فلورية. يتميز التهجين الموضعي in situ لـ RNA بالقدرة على صبغ عينات كاملة التثبيت للتحديد الموضعي ثلاثي الأبعاد1. ومع ذلك، فإن هذه التقنية تتقيد عادةً بافتقارها إلى القدرة على تعدد الإرسال لأكثر من هدفين، ما لم تُستخدم تقنيات محسنة لتطبيقات محددة للغاية، أو يُستخدم تهجين DNA، مثل تقنية M-FISH، التي تُستخدم للتوسيم الفلوري للكروموسومات12,13.
يُعد الفلورة المناعية (Immunofluorescence)، الذي طوره كونس وآخرون لأول مرة في عام 194114,15، طريقة للكشف عن البروتين المستهدف في العينات المثبتة أو المجمدة. وباختصار، يتم حجب العينات لتقليل الارتباط غير النوعي بالمناطق غير المستهدفة في النسيج. بعد ذلك، يتم تحضين العينات مع جسم مضاد أولي نوعي لمستضد مستهدف. ويمكن أن تكون الأجسام المضادة الأولية مقترنة مباشرة بصبغة أو بروتين فلوري، أو يمكن استهدافها هي نفسها باستخدام جسم مضاد ثانوي مقترن بفلوروفور يستهدف النوع الذي تم إنتاج الجسم المضاد الأولي فيه. وتتمثل فائدة استخدام الأجسام المضادة الثانوية مقارنة بالأجسام المضادة الأولية المقترنة مباشرة في تضخيم الإشارة، مما يؤدي إلى حساسية أكبر. كما يمكن استخدام أجسام مضادة أولية متعددة تم إنتاجها في أنواع مختلفة لتحقيق كشف متعدد للأهداف، وذلك باستخدام أجسام مضادة مقترنة مباشرة أو أجسام مضادة ثانوية مقترنة بفلوروفورات ذات أطياف إثارة وانبعاث مختلفة.
تعتبر التقنيات التقليدية، مثل التهجين الموضعي in situ للحمض الريبي النووي (RNA) والفلورة المناعية، محدودة. فعادةً ما يسمح التهجين الموضعي in situ لـ RNA بالكشف عن هدف واحد فقط في العينة، مما يجعل دراسة التفاعل بين أنواع الخلايا والمسارات المختلفة محدودة للغاية. علاوة على ذلك، تُجرى الفلورة المناعية تقليديًا في مقاطع نسيجية بدلاً من العينات الكاملة (whole-mount)، مما يحصر الدقة المكانية في بُعدين (2D). وقد ركزت التقنيات الأحدث على تعددية الكشف عن الأهداف في أنظمة ثلاثية الأبعاد (3D). وقد سمح تحسين بروتوكولات الفلورة المناعية باستخدام هذه التقنية في العينات الكاملة16. بالإضافة إلى ذلك، تم تطوير تقنيات تتيح تعددية الكشف عن النسخ (transcript detection) باستخدام مجسات مُوسومة فلوريًا، بطريقة مشابهة للفلورة المناعية.
وُصف نظام RNAscope لأول مرة في عام 2012 من قبل Wang وآخرون، وهو يعتمد على الـ RNA في الموقع تقنية التهجين17، مما يسمح بتحديد المواقع المكانية للنُسخ في العينات المثبتة. وباختصار، يتم جعل العينات المثبتة نفوذة، مما يسمح بتسلل المسابير المستهدفة التي ترتبط بتسلسلات النُسخ المكملة. وتتميز مسابير RNAscope بـ "تصميم Z المزدوج" الذي يتكون من منطقة متخصصة في منطقة تتراوح بين 18 و25 زوجاً قاعدياً من الحمض الريبي النووي (RNA) المستهدف، ومنطقة ذيل تحتوي على 14 زوجاً قاعدياً، ومنطقة فاصلة تربط بين "مسبارين من نوع Z". وتشكل منطقتا الذيل معاً منطقة بطول 28 زوجاً قاعدياً يرتبط بها مضخم أولي. بعد ذلك، يتم تضخيم أزواج مسابير Z المرتبطة من خلال ربط سلسلة من المضخمات التي ترتبط بمواقع موجودة على المضخم الأولي. ويمكن استهداف المضخمات بشكل محدد باستخدام مسابير مُوسومة بعلامات فلورية أو بإنزيم بيروكسيداز الفجل (HRP). وتكمن فكرة تصميم Z المزدوج للمسابير في منع تضخيم المسابير غير المرتبطة، مما يقلل من التضخيم غير النوعي، بينما يهدف استخدام مضخمات متعددة إلى تعزيز الحساسية. وتتمثل ميزة RNAscope مقارنة بـ RNA في الموضع إن التهجين هو القدرة على إجراء كشف متعدد النسخ في عينة واحدة عن طريق استخدام علامات فلورية متميزة لكل هدف. وقد استُخدم تقنية RNAscope على نطاق واسع في مقاطع العينات المثبتة بالفورمالين والمطمورة في البرافين، مما يتيح الكشف المكاني عن النسخ في بُعدين.18وقد وصفت دراسات أحدث استخدام صبغ RNAscope للعينات الكاملة في أجنة الفئران، مما أتاح إجراء تحليل ثلاثي الأبعاد لعمليات نمو أساسية.19.
نصف هنا طرقاً محسنة لصبغ أجنة الفئران المثبتة في المراحل E8.5 وE9.5 في كامل العينة (whole-mount) باستخدام كل من التهجين الموضعي in situ بتقنية RNAscope والفلورة المناعية. يصف هذا البروتوكول طريقة منقحة للجمع بين الفلورة المناعية وتقنية RNAscope، والتي أثبتت نجاحها في أجنة E8.5/E9.5 في كامل العينة، وتسمح بإضافة قناة إضافية لصبغ RNAscope في كامل العينة من خلال دمج صبغ باستخدام مسبار RNAscope رابع مقترن بالفلوروفور Opal 780، كما يوضح طريقة قابلة للتطبيق على نطاق واسع لتحليل الأجنة المصبوغة. يمكن استخدام هذه الطرق لتعزيز المعرفة بالعمليات التنموية الرئيسية مثل هجرة الخلايا ومسارات الإشارات من خلال السماح بالتصور المتعدد لما يصل إلى 4 أهداف من البروتينات والنسخ الجينية عبر صبغ الفلورة المناعية وتقنية RNAscope، والتحليل الكمي ثلاثي الأبعاد في أجنة الفئران E8.5/E9.5 في كامل العينة أثناء التطور.
البروتوكول
أُجريت جميع التجارب الحيوانية وفقاً لقانون الحيوانات (الإجراءات العلمية) لعام 1986 في المملكة المتحدة، وبموافقة مجلس مراجعة رعاية الحيوان بجامعة أكسفورد ومكتب الداخلية (ترخيص المشروع PP7967396).
1. تشريح وتجفيف وتخزين أجنة الفئران في المرحلتين E8.5 و E9.5
- يتم التخلص من الإناث الحوامل باستخدام طريقة معتمدة في اليوم الجنيني E8.5 أو E9.5 من الحمل.
ملاحظة: تم التخلص من الفئران في هذه الدراسة باستخدام الخلع العنقي يليه التأكد من الوفاة عن طريق نزف الدم. يتم نزف الدم عن طريق إجراء شق في البطين لتسهيل النزيف. يمكن استخدام طرق أخرى، مثل استنشاق CO2، ولكن لم يتم اختبارها في هذا البروتوكول. - افتح البطن أولاً عن طريق القطع عبر الجلد، ثم جدار البطن.
ملاحظة: امسح الفئران بـ 70% ethanol لتقليل القشرة والتلوث البكتيري. عند فتح جدار البطن، من المهم سحب الجدار بعيداً عن البطن، ثم إجراء شق صغير. اقطع جدار البطن على شكل حرف V، مع تجنب قطع الرحم عن غير قصد. - أزل الرحم عن طريق القطع عند نقطة التقاء الرحم بالمهبل. بالنسبة لكلا القرنين الرحميين، اقطع الرحم بعيداً عن الدهون البطنية، مع إجراء شقوق صغيرة حتى تصل إلى المبيض.
ملاحظة: من المفيد تدوين موقع كل جنين داخل الرحم. قم بتشريح المبيض مع الرحم للمساعدة في الحفاظ على التوجيه. - اقطع كل جنين على حدة من القرن الرحمي، ضمن الرحم المحيط به، وضعه في وعاء يحتوي على 1× Hanks’ Basic Salt Solution مع 5mM EDTA.
- باستخدام ملقط دقيق، قشر الرحم برفق عن الجنين والمشيمة والغشاء الساقط (decidua) المحيط بكليهما.
- حدد مكان التقاء المشيمة بجزء من الغشاء الساقط الأمومي المحيط بالجنين؛ حيث يجب أن يكون هناك فرق طفيف في اللون بين هذين القسمين. افصل الجنين بعناية عن طريق القطع عبر الغشاء الساقط الأمومي لفصل المشيمة وكشف الجنين.
- افصل الجنين بلطف داخل كيس المح داخل الأنسجة المتبقية. باستخدام ملقط دقيق، أزل كيس المح المحيط بالجنين. أزل الغشاء السلوي (amnion). قم بعد القطع الجسمية (somites) لتحديد المرحلة الجنينية الدقيقة.
ملاحظة: يحيط كيس المح بالجنين ويكون أكثر سمكاً وعتمة. أما الغشاء السلوي فهو رقيق وشفاف ويلتصق بشدة بالجنين. يجب إزالته بعناية لضمان تغل المسبار/الأجسام المضادة لاحقاً. بالنسبة للأجنة الأكبر سناً، يمكن ثقب رأس الجنين بملقط دقيق لمنع انحباس المسبار في بطينات الدماغ النامية. من المهم في هذه المرحلة إزالة أكبر قدر ممكن من كيس المح. حيث أن بقايا كيس المح تعطي فلورة قوية عند استخدام الأجسام المضادة الثانوية المضادة للفئران. - اختياري: احتفظ بكيس المح لإجراء التنميط الجيني عن طريق غسله في 50 µL من PBS أو 70% ethanol، اعتماداً على عملية التنميط الجيني اللاحقة، في أنبوب Eppendorf سعة 1.5 mL لإزالة الدم الملوث. أمسك كيس المح في PBS باستخدام ملقط دقيق وقم برجّه يدوياً. خذ كيس المح المغسول وضعه في أنبوب Eppendorf نظيف سعة 1.5 mL أو في طبق تنميط جيني. يُخزن لمدة تصل إلى 4 أسابيع عند -20 °C أو يتم الانتقال إلى تقنية استخلاص DNA المفضلة.
- باستخدام ماصة باستور من البولي إيثيلين منخفض الكثافة (LDPE) سعة 2 mL، اسحب الجنين برفق وانقله إلى أنبوب Eppendorf مستدير القاع سعة 2 mL يحتوي على 1 mL من 4% paraformaldehyde (PFA) المحضر حديثاً أو من مخزون مجمد، مع الحرص على إضافة الحد الأدنى من وسائط التشريح إلى PFA.
ملاحظة: عند تشريح أجنة E9.5، اقطع طرف ماصة باستور بزاوية لزيادة حجم الفتحة. هذا أمر مهم لتجنب إتلاف الجنين أثناء السحب بالماصة. يعد استخدام أنابيب Eppendorf مستديرة القاع سعة 2 mL أمراً مهماً لمنع التصاق الجنين في قاع الأنبوب وتسهيل استعادته. تجنب دورات التجميد والإذابة المتكررة لـ PFA.
تحذير: مادة PFA سامة ومسرطنة. استخدم معدات الوقاية الشخصية (PPE) المناسبة ولا تستنشقها أو تبتلعها. مادة PFA المسحوقة خطيرة إذا استنشقت؛ لذا يجب تحضيرها في خزانة استخلاص الغازات (fume hood). - قم بتحضين الجنين في 4% PFA لمدة 16–24 h عند 4 °C مع الرج اللطيف، على أن تكون الأنابيب في زاوية قائمة بالنسبة لاتجاه الرج.
- قم بتجفيف الجنين باستخدام الغسلات في سلسلة من الميثانول. باستخدام ماصات باستور LDPE ومع الحرص على عدم سحب الجنين بالماصة، أزل PFA وأضف 1 mL PBS. اغسل لمدة 10 min في درجة حرارة الغرفة (RT) مع الرج اللطيف، بحيث تكون الأنابيب بزاوية 90° بالنسبة لمستوى الرج. كرر العملية للغسلات في 25%، 50%، 75% و 2× 10% methanol في PBS.
- استبدل غسلة 10% methanol الأخيرة بـ 1.5 mL من 10% methanol طازج واحفظه عند -20 °C.
ملاحظة: يمكن تخزين العينات لسنوات عند -20 °C. احرص على تجنب التبخر.
تحذير: الميثانول قابل للاشتعال وسام. ارتدِ معدات الوقاية الشخصية (PPE) المناسبة وخزنه في خزانة المواد القابلة للاشتعال. لا تستنشقه أو تبتلعه.
2. صبغ الأجنة الكاملة في المرحلتين E8.5 و E9.5 للكشف عن البروتينات باستخدام التألق المناعي
ملاحظة: تُجرى جميع خطوات الغسل بحجم 1 mL في أنبوب Eppendorf دائري القاع سعة 2 mL. نَفِّذ خطوات الغسل بحجم 1mL مع هزّ الأنبيب بلطف وبزاوية 90° بالنسبة لمستوى الهزّ. قم بإزالة السائل واستبداله باستخدام ماصة Pasteur من مادة LDPE سعة 2 mL، مع الحرص على عدم سحب الجنين بالماصة. عند استخدام أجنة في المرحلة E9.5، قم بقص طرف ماصة Pasteur لمنع إتلاف الجنين في حالة السحب غير المقصود. خف الميثانول في PBS. يمكن صبغ الأجنة بشكل فردي أو في أنبوب يحتوي على ما يصل إلى 12 جنيناً مجمعة. بالنسبة لأجنة E9.5: يمكن صبغ ما يصل إلى حالتين في أنبوب واحد. في حال استخدام حالات متعددة، قم بقص ذيل إحدى المجموعات حتى يمكن تمييزها أثناء التصوير.
- استخراج الأجنة من -20 °C والتخزين والسماح لها بالوصول إلى درجة حرارة الغرفة (RT) عند 20-26 °C لمدة 10-20 دقيقة. تأكد من أن الأجنة لها أعداد متماثلة من الجسيدات (somites) لضمان مقارنة مراحل نمائية متشابهة.
- يُجرى تبييض وتنفِيذ الأجنّة في محلول مكون من ميثانول بنسبة 10%، وديميثيل سلفوكسيد (DMSO)، وبيروكسيد الهيدروجين بنسبة 30% بنسبة 4:1:1 لمدة ساعتين.
تنبيه: بيروكسيد الهيدروجين مادة أكّالة ومخرشة، ويمكن أن يسبب ضرراً جسيماً للعين ويكون ضاراً في حال ابتلاعه. في حال وصول بيروكسيد الهيدروجين إلى العين، تُشطف بالماء لعدة دقائق. يشكل بيروكسيد الهيدروجين خطراً على البيئة المائية؛ لذا يجب التخلص منه في منشأة معتمدة للتخلص من النفايات. يجب ارتداء معدات الوقاية الشخصية المناسبة، بما في ذلك واقي العينين. يُمنع ابتلاعه. - سخن القالب الحراري مسبقاً إلى 98 °C، قم بتحضير محلول منظم إزالة القناع بالسترات عن طريق تخفيف 100 µL من محلول منظم كشف السيتريت (citrate unmasking buffer) في 10.7 مل من الماء المقطر.
- أعد ترطيب العينات عن طريق شطفها بميثانول بتركيز 70%، ثم غسلها بميثانول بتركيز 50%، ثم ميثانول بتركيز 25%، ثم بمحلول PBS لمدة 10 دقائق لكل خطوة في درجة حرارة الغرفة مع التحريك المستمر.
- سخن محلول منظف الروابط المعتمد على السترات مسبقاً إلى 98 °C استخدم وحدة التسخين (heat block) التي تم تسخينها مسبقاً لمدة 20 دقيقة على الأقل. اغسل الأجنة في محلول سترات لإزالة القناع (citrate unmasking buffer) ثلاث مرات لمدة 10 دقائق في كل مرة في درجة حرارة الغرفة.
- بعد عمليات الغسل في درجة حرارة الغرفة، أضف محلول منظف القناع من السترات المسخن مسبقاً إلى الأجنة، ثم سخنها في كتلة التسخين عند 98 °C لمدة 10 دقائق. ارفع الخليط عن مصدر الحرارة واتركه ليبرد لمدة 40 دقيقة على الأقل.
ملاحظة: لا تستخدم محلول استرجاع المستضد بـ "سترات إزالة القناع" (citrate unmasking buffer) في أجنة المرحلة E8.5، لأن ذلك قد يؤدي إلى تفك الأجنة. قد تصبح الأجنة لزجة عند وضعها في محلول "سترات إزالة القناع"، لذا حافظ على سكون عمليات الغسيل لتجنب تلف الأجنة الناتج عن التكتل. - اغسل الأجنة لمدة 3 × لمدة 10 دقائق في محلول PBS + 0.1% Triton-X في درجة حرارة الغرفة مع التحريك المستمر. يتم حجب الأجنة لمدة تتراوح بين 16 و24 ساعة في الحد الأدنى من 150 µL/tube محلول PBS + 0.1% Triton-X + 10% مصل حمير طبيعي عند 4 °C مع الرج.
- قم بتحضير الأجسام المضادة الأولية عن طريق تخفيفها في محلول PBS + 0.1% Triton-X + 10% مصل حمير طبيعي بالتركيزات الموصى بها قبل ساعة واحدة من وضعها على الأجنة، وتحفظ في 4 °C.
- قم بإزالة محلول الحجب من الأجنة وأضف ما لا يقل عن 150 µL/tube من محلول الأجسام المضادة المُخف. تُحضن العينة لمدة تتراوح بين يوم إلى 3 أيام في درجة حرارة 4 °C مع الهز.
ملاحظة: يمكن دمج الأجسام المضادة الأولية في تحليل متعدد (multiplexed) طالما أن كل جسم مضاد قد تم إنتاجه في نوع مختلف من الكائنات. إن استخدام أجسام مضادة منتجة في الفئران، وما يليها من أجسام مضادة ثانوية مضادة للفئران، يمكن أن يؤدي إلى تلوين غير نوعي ساطع. وبدلاً من ذلك، يمكن في بعض الحالات دمج أجسام مضادة أولية من نوع واحد، حيث تكون الأجسام المضادة الأولية من نمط مصلي (isotype) مختلف وتُدمج مع أجسام مضادة ثانوية نوعية للنمط المصلي. - اشطف الأجنة في محلول PBS + 0.1% Triton-X، واغسل الأجنة لمدة 6 × لمدة 30 دقيقة في محلول PBS + 0.1% Triton-X في درجة حرارة الغرفة.
- قم بحجب الأجسام المضادة الثانوية عن طريق تخفيف الأجسام المضادة الثانوية المناسبة والمقترنة بفلورسنت وDAPI (أو علامة بديلة للنوى) في محلول 0.1% Triton-X + 10% مصل حمير طبيعي بالتركيزات الموصى بها، وذلك قبل ساعة واحدة من وضعها على الأجنة عند 4 °C في الظلام.
- أزل سائل الغسل وأضف محلول الجسم المضاد الثانوي المخف إلى الأجنة، ثم حضنها لمدة تتراوح بين 16 و24 ساعة عند 4 °C مع الرج في الظلام.
ملاحظة: نوصي باستخدام أجسام مضادة ثانوية من شظايا F(ab) المقترنة بفلوروفور بدلاً من الأجسام المضادة الكاملة؛ إذ إن شظايا F(ab) أصغر حجماً، وبالتالي تتميز بقدرة أفضل على النفاذ إلى الأنسجة، كما يساعد غياب منطقة Fc على تقليل الخلفية غير النوعية. - اشطف الأجنة في محلول PBS + 0.1% Triton-X، ثم اغسل الأجنة لمدة 6 × لمدة 30 دقيقة في محلول PBS + 0.1% Triton-X في درجة حرارة الغرفة مع التحريك المستمر (rocking) في الظلام. تُحفظ لمدة تصل إلى 4 أسابيع في محلول PBS + 0.1% Triton-X عند 4 °C في الظلام.
3. صبغ أجنة كاملة في المرحلتين E8.5 وE9.5 للكشف عن النسخ باستخدام تقنية RNAscope
ملاحظة: تكون جميع خطوات الغسيل بحجم 1 mL، وتُجرى في أنبوب Eppendorf سعة 2 mL. تُنفذ خطوات الغسيل بحجم 1 mL مع الرج اللطيف ووضع الأنابيب بزاوية 90° بالنسبة لمستوى الرج. يتم إزالة السائل واستبداله باستخدام ماصة Pasteur من نوع LDPE سعة 2 mL، مع الحرص على عدم سحب الجنين بالماصة. عند استخدام أجنة في المرحلة E9.5، يجب قطع طرف ماصة Pasteur لمنع تلف الجنين في حالة السحب غير المقصود. يجب تخفيف الميثانول باستخدام PBS. يتم تشغيل فرن التهجين قبل البدء عند درجة حرارة 40 °C مع وضع بعض المناديل المبللة في القاع. يمكن صبغ الأجنة بشكل فردي أو في أنبوب يحتوي على ما يصل إلى 12 جنيناً مجمعة. بالنسبة لأجنة E9.5: يمكن صبغ ما يصل إلى حالتين في أنبوب واحد. في حالة استخدام ظروف متعددة، يتم قطع ذيل إحدى المجموعات حتى يمكن تمييزها عند التصوير.
- قم بتجهيز طاولة العمل، والمصّاصات، والحامل عن طريق تنظيفها بـإيثانول بتركيز 70%، يليه استخدام محلول لإزالة تلوث الـ RNase.
- أعد ترطيب الأجنة من خلال سلسلة متدرجة من الميثانول المخف في محلول PBS بتركيزات 75%، و50%، و25%، ثم محلول PBS، ثم محلول PBS + 0.1% Tween 20، لمدة 5 دقائق لكل خطوة مع الرج اللطيف.
- قم بنفاذ الأجنة عن طريق تحضينها في ~75 µL (3 قطرات) من protease III لمدة 20 دقيقة في درجة حرارة الغرفة مع الرج العمودي.
ملاحظة: يمكن تحسين وقت النفاذية بناءً على المرحلة الجنينية أو الحجم. حيث تُعد فترة 20 دقيقة مناسبة للأجنة في المرحلتين E8.5 وE9.5، ولكن قد تكون هناك حاجة لفترات تحضين أطول لرؤية التراكيب الأكثر عمقاً في أجنة المرحلة E9.5. ومن الجدير بالذكر أن إطالة خطوات النفاذية بشكل مفرط قد تؤدي إلى تفك الجنين. - اغسل الأجنة في محلول PBS + 0.01% Tween 20 لمدة 3 × ٥ دقائق.
- قم بتحضير مجسات RNAscope عن طريق وضع حوالي 150 µL (حوالي 6 قطرات) من مجسات C1 في أنبوب Eppendorf. يتم تخفيف أي من مجسات C2–C4 في مجس C1 بتركيز 1:50، ثم تُحضن الأنابيب في وضع عمودي داخل فرن تهجين عند 40 °C لمدة 10 دقائق قبل وضعه على الأجنة.
ملاحظة: بالنسبة لكل مجموعة من مجسات RNAscope في التجربة، يشير الحرف 'C' إلى تعيين القناة. يلزم استخدام مجس C1، حيث يتم تخفيف جميع المجسات الأخرى في مجس C1. تأكد من استخدام مجس واحد فقط من كل تعيين قناة في كل مزيج. يمكن إعادة استخدام مزيجات المجسات لمرة واحدة على الأقل× إذا خُزنت في 4 °C لمدة تصل إلى 6 أسابيع. - أزل الغسلة الأخيرة وأضف 150 µL من خليط المسبار إلى كل أنبوب من الأجنة. تُحضن الأنابيب في وضع عمودي داخل فرن تهجين لمدة تتراوح بين 16 و24 ساعة عند درجة حرارة 40 °C.
- أزل مزيج المسبار واغسل في 0.2× محلول منظم من الملح والمستخلص السيتريت الصوديوم (SSC) + 0.1% من Tween 20 لمدة 3 × ٨ دقائق في درجة حرارة الغرفة.
- تثبيت الأجنة لاحقاً في محلول 4% PFA في درجة حرارة الغرفة مع الرج اللطيف، مع وضع الأنابيب في 90° إلى مستوى التأرجح.
- اغسل في 0.2× محلول SSC المنظم + 0.1% Tween 20 لمدة 3 × ٨ دقائق في درجة حرارة الغرفة.
- تُحضن العينات في حوالي 150 µL (6 قطرات)/أنبوبة من كاشف Amp1 لمدة 30 دقيقة في 40 °C في فرن تهجين، مع الحفاظ على الأنابيب في وضع عمودي.
- يُغسل في 0.2× محلول SSC المنظم + 0.1% Tween 20 لمدة 3 × ٨ دقائق في درجة حرارة الغرفة.
- تُحضن العينات في حوالي 150 µL (6 قطرات)/أنبوبة من كاشف Amp2 لمدة 30 دقيقة عند 40 °C في فرن تهجين، مع إبقاء الأنابيب في وضع عمودي.
- اغسل في 0.2× محلول SSC المنظم + 0.1% Tween 20 لمدة 3 × 8 دقائق في درجة حرارة الغرفة.
- تُحضن العينات في حوالي 150 µL (6 قطرات)/أنبوب من كاشف Amp3 لمدة 15 دقيقة عند 40 °C في فرن التهجين، مع الحفاظ على الأنابيب في وضع عمودي.
- اغسل في 0.2× محلول SSC المنظم + 0.1% Tween 20 لمدة 3 × 8 دقائق في درجة حرارة الغرفة.
- يُحضن في 150 µL (6 قطرات) من HRP-C1 لمدة 15 دقيقة في 40 °C بوضع عمودي في فرن تهجين. تُغسل في 0.2× محلول SSC المنظم + 0.1% Tween 20 لمدة 3 × 8 دقائق في درجة حرارة الغرفة.
- تُحضن العينات مع فلوروفور مُخف في محلول TSA المنظم لمدة 30 دقيقة عند 40 °C في فرن تهجين، مع الحفاظ على الأنابيب في وضع عمودي.
ملاحظة: يمكن استخدام فلوروفورات RNAscope مع مسابر مختلفة. ويعد TSA-vivid 570 الأكثر سطوعاً، يليه TSA-vivid 650، ثم TSA-vivid 520. اختر الفلوروفورات بناءً على الوفرة المتوقعة للمسابر. - اغسل في 0.2× محلول SSC المنظم + 0.1% Tween 20 لمدة 3 × ٨ دقائق في درجة حرارة الغرفة.
- حضّن العينات في الظلام في درجة حرارة تبلغ تقريباً 150 µL (6 قطرات)/أنبوب من كاشف حجب HRP لمدة 15 دقيقة عند 40 °C في فرن تهجين، مع الحفاظ على الأنابيب في وضع عمودي.
- اغسل في 0.2× محلول SSC المنظم + 0.1% Tween 20 لمدة 3 × ٨ دقائق في درجة حرارة الغرفة.
ملاحظة: يمكن إيقاف البروتوكول مؤقتاً عند هذه الخطوة لمدة تتراوح بين 16 و24 ساعة عن طريق ترك الأجنة في غسلة الشطف الأخيرة في درجة حرارة الغرفة. - كرر الخطوات 3.16-3.20 لكل مسبار من المسابير C2-C4 في حال استخدامها، مع استبدال HRP-C1 بـ HRP C2/C3/C4 حسب الاقتضاء. استخدم فلوروفوراً مختلفاً لكل مسبار منفصل.
ملاحظة: في حال استخدام مجسات C4، يلزم توفير طقم RNAscope 4-plex المساعد والفلوروفور Opal 780. يجب استخدام Opal 780 فقط عندما تكون هناك حاجة لتعدد الإرسال باستخدام 4 مجسات، كما يجب أن يكون آخر فلوروفور يُستخدم نظراً لحساسيته للتحلل. عند اختيار الفلوروفورات، من المهم مراعاة إمكانات منصة المجهر التي ستستخدمها. تأكد دائماً من أن نظام التصوير يحتوي على أطوال موجات إثارة وفلترة انبعاث وحساسية كاشف مناسبة لجميع المجسات المستخدمة. عند الصبغ باستخدام Opal 780، استبدل الخطوات 3.17-3.19 بما يلي:- حضن العينات في 150 µL/tube محلول TSA-DIG (مُخف بنسبة 1:10 في منظم TSA) لمدة 30 دقيقة في درجة حرارة الغرفة مع الرج اللطيف.
- اغسل في 0.2× محلول SSC المنظم + 0.1% Tween 20 لمدة 3 × ٨ دقائق في درجة حرارة الغرفة.
- تُحضن العينات في الظلام في درجة حرارة تبلغ تقريبًا 150 µL (6 قطرات)/أنبوب من كاشف حجب HRP لمدة 15 دقيقة عند 40° في فرن تهجين، مع الحفاظ على الأنابيب في وضع عمودي.
- اغسل بـ 0.2× محلول منظم SSC + 0.1% Tween 20 لمدة 3 × 8 دقائق في درجة حرارة الغرفة.
- تُحضن العينات في 150 µL/tube من Opal Polaris 780 المخف في Antibody Diluent/Block لمدة 45 دقيقة عند 40 °C في فرن تهجين، مع الحفاظ على الأنابيب في وضع عمودي
- تُحضن العينات في الظلام في درجة حرارة تقريبًا 150 µL من DAPI المُخف في محلول SSC المنظم بتركيز 0.2 x + 0.1% من Tween 20 (التركيز العامل 1µg/mL) لمدة تتراوح بين 16 و24 ساعة عند 4 °C مع الرج اللطيف، مع الحفاظ على الأنابيب في وضع عمودي
- اغسل في 0.2× محلول SSC المنظم + 0.1% Tween 20 لمدة 3 × لمدة 8 دقائق في درجة حرارة الغرفة. تُحفظ العينات لفترة قصيرة في محلول PBS عند 4 °C.
4. صبغ RNAscope والفلورة المناعية المدمج في أجنة كاملة في المرحلة E8.5
- اتبع الخطوات من 3.1 إلى 3.21 من بروتوكول RNAscope.
ملاحظة: قد يساعد تقليل وقت خطوة النفاذية في بروتوكول RNAscope في تحسين أداء الأجسام المضادة في التألق المناعي. - اغسل العينات لمدة تتراوح بين 16 و24 h في 1 mL من محلول SSC buffer بتركيز 0.2× + 0.1% Tween 20 في درجة حرارة الغرفة (RT) مع التحريك المستمر.
- اتبع الخطوات من 2.7 إلى 2.12 من بروتوكول التألق المناعي.
5. تحضير الأجنة الكاملة للتصوير باستخدام المجهر البؤري المسحي النقطي أو المجهر البؤري ذو القرص الدوار
- بعد التلوين، وباستخدام ماصة باستور من مادة LDPE، اسحب الجنين برفق وانقله إما إلى شريحة تصوير متعددة الآبار أو شريحة تجويفية، مع الحرص على عدم جفاف الجنين. إذا لزم الأمر، قم بتوجيه الجنين بالشكل المطلوب، مع توخي الحذر لتجنب إتلاف العينة.
ملاحظة: تعتبر الشرائح التجويفية مفيدة لضمان توجيه الأجنة، ولكنها قد تؤدي إلى ضغط الجنين وتلف الأنسجة. أما الشرائح التصويرية متعددة الآبار فهي رقيقة على الأجنة، ولكنها قد تؤدي إلى تباين في توجيه التصوير وقد تسبب ظهور عيوب اصطناعية عند حواف الآبار. - اختياري – ترويق الأنسجة: يتم ترويق الأنسجة عن طريق إزالة الغسلة الأخيرة برفق من الجنين وإضافة ما يصل إلى 20 µL من محلول CUBIC-R داخل طبق التصوير في درجة حرارة الغرفة RT. يُحفظ الجنين في حضانة واحدة من محلول CUBIC-R لمدة لا تقل عن 40 min قبل التصوير. يجب تصوير العينات المروقة في نفس محلول CUBIC-R المستخدم في الحضانة.
تنبيه: مادة CUBIC-R سامة عند استنشاقها ويمكن أن تؤدي إلى تهيج العين والجلد. تجنب استنشاقها واستخدم معدات الوقاية الشخصية المناسبة عند التعامل معها.
ملاحظة: تصبح الأجنة شفافة تماماً بعد فترة وجيزة من التعرض لمحلول CUBIC-R. أضف CUBIC-R مباشرة إلى طبق التصوير بعد توجيه الجنين، واحرص على عدم فقدان الجنين. يحدث تراجع جزئي في عملية الترويق إذا تمت إزالة CUBIC-R من الجنين واستبداله بمحلول PBS. - في حال عدم إجراء ترويق للأنسجة، قم بملء الآبار بمحلول PBS لضمان عدم جفاف الأجنة بشكل مفرط. في حال استخدام شريحة تجويفية، قم بتغطية الشريحة باستخدام غطاء شريحة (coverslip) من قياس #1.5. أضف غطاءً إلى شريحة التصوير متعددة الغرف.
ملاحظة: يمكن تصوير الأجنة باستخدام مجموعة واسعة من المجاهر الضوئية. ونظراً لسماكة العينة، من الضروري اختيار مجهر يمكنه التصوير عند العمق المناسب. اختر عدسة شيئية مناسبة للبنية المراد تصويرها؛ حيث توفر العدسة الشيئية بقوة 10x وفتحة عددية منخفضة نظرة عامة جيدة لتلوين الجنين كاملاً، ولكن قد تكون هناك حاجة إلى عدسة شيئية ذات تكبير وفتحة عددية أعلى لتحليل البنيات الأصغر أو الأعمق بدقة عالية. يمكن للأجنة أحياناً أن تتحرك في طبق التصوير، مما يتسبب في حدوث أخطاء، لذا من المهم تقليل وقت التصوير قدر الإمكان.
6. تحليل النوى لتقدير الأعداد وكثافة الإشارة
ملاحظة: يغطي هذا البروتوكول تحليل النوى باستخدام برنامج Zeiss Arivis Pro؛ وقد تكون تحليلات مماثلة ممكنة باستخدام برامج بديلة لتحليل الصور. يعمل هذا البروتوكول بشكل أفضل مع العينات النووية، مثل النسخ أو البروتينات النووية. وفي حال تحليل البروتينات غير النووية، قد يكون من المفيد استخدام صبغة لتصوير بنية الخلية، مثل CellMask، التي تصبغ أغشية الخلايا، وفحص تعبير المؤشرات داخل الخلية بأكملها.
- قم بتحويل ملفات التصوير إلى صيغة SIS باستخدام محول Zeiss Arivis SIS. افتح برنامج المحول وحدد "Add files"، ثم "Browse folder". اختر مجلد الصور المصدر. اختر التحويل بنسبة 1 إلى 1 (1-to-1 conversion). حدد دليل المخرجات، ثم اختر "start conversion".
- استورد ملفات SIS إلى برنامج Zeiss Arivis Pro من خلال تحديد "file" (ملف)، ثم "open" (فتح)، ثم اختر ملف SIS المطلوب.
- قم بإعداد البيانات لتحليل خط المعالجة عن طريق تدوير الصور. وللقيام بذلك، اختر "Data" ثم "Transformation gallery". اختر وظيفة "rotation" وقم بتدوير الجنين بحيث يمكن محاذاة المنطقة المستهدفة ضمن مربع مستطيل صلب.
- قم بقص مناطق الاهتمام عبر تحديد "Data"، ثم "Transformation gallery"، واختيار أمر "Crop". اسحب الحواف لقص منطقة الاهتمام ثم حدد "Ok".
ملاحظة: بالنسبة لمنطقة الرأس في أجنة المرحلة E8.5، يتم قص المنطقة لتشمل الرأس، مع قطع الصورة عند الثلمة القريبة من الحويصلة الأذنية. وبالنسبة لمنطقة القلب في أجنة المرحلة E8.5، يتم القص من أسفل الثلمة القريبة من الحويصلة الأذنية وصولاً إلى أسفل أنبوب القلب. وعند قص الصور المدوّرة، يتم استئصال المناطق السوداء الناتجة كأثر جانبي لعملية التدوير. - ابدأ مسار تحليل جديد باختيار "Analysis" ثم "Analysis Panel"، ثم اختر "new pipeline".
- منطقة الاهتمام (ROI) للإدخال: اضبط منطقة الاهتمام على "مجموعة الصور الحالية"، واضبط القنوات على "كل القنوات"، والقياس على "10%". تأكد من تحديد خيار "تضمين Z".
ملاحظة: يمكن تقليل حجم الصور (على سبيل المثال، إلى 50%) إذا كانت كبيرة جداً أو كانت عملية المعالجة بطيئة للغاية؛ وسيؤدي ذلك إلى خفض دقة الصور. - حدد النوى (المؤشر رقم 1) باستخدام أداة تحديد الكتل (blob finder): اختر "إضافة عملية" (Add Operation)، ثم ابحث عن "محدد الكتل" (Blob finder). وفي القناة، اختر القناة التي تحتوي على مؤشر النوى. اضبط القطر على 6 µm وتحسين عتبة الاحتمالية بناءً على كثافة الصبغ. يجب اكتشاف النوى في المستوي مع ضمان وجود فصل مناسب بينها. قم بتعيين حساسية التقسيم (split sensitivity)؛ وتعد قيمة 5% قيمة معقولة لمعظم العينات. اضبط "التطبيع" (Normalization) على النقطة الزمنية الأولى. حدد اسم المخرج، على سبيل المثال: Blob finder (nuclei). يمكن معاينة الأجسام المكتشفة عن طريق تحديد أيقونة "العين" الموجودة في الشريط العلوي للعملية.
- حدد تعبير المؤشر #2 باستخدام أداة تحديد البقع (blob finder): اختر "إضافة عملية" (Add Operation)، ثم ابحث عن "محدد البقع" (Blob finder). في القناة، اختر القناة التي تحتوي على مؤشر النوى. اضبط القطر على 6 µm وتحسين عتبة الاحتمالية بناءً على كثافة الصبغ. يجب الكشف عن "البقع" (Blobs) الموجبة للمؤشر رقم 2 في المستوى مع مراعاة الفصل المناسب بينها. قم بتحديد حساسية الفصل (split sensitivity)، وتعد قيمة 5% قيمة معقولة لمعظم العينات. اضبط "التطبيع" (Normalization) على النقطة الزمنية الأولى. حدد اسم المخرج، على سبيل المثال: Blob finder (channel 2). يمكن معاينة الكائنات المكتشفة عن طريق تحديد أيقونة "العين" في الشريط العلوي للعملية.
- حدد تعبير المؤشر رقم 3 باستخدام أداة تحديد البقع (blob finder): اختر "إضافة عملية" (Add Operation)، ثم ابحث عن "محدد البقع" (Blob finder). في القناة، اختر القناة التي تحتوي على مؤشر النوى. اضبط القطر على 6 µm وتحسين عتبة الاحتمالية بناءً على شدة الصبغ. يجب رصد "البقع" (Blobs) الموجبة للمؤشر رقم 3 في المستوى بفصل مناسب. قم بضبط حساسية التقسيم (split sensitivity)، وتعد قيمة 55% قيمة معقولة لمعظم العينات. اضبط "التطبيع" (Normalization) على µ firsعند النقطة الزمنية t. قم بتعيين اسم المخرج، على سبيل المثال، Blob finder (channel 3). ويمكن تصور الكائنات المكتشفة عن طريق تحديد أيقونة "العين" في الشريط العلوي للعملية.
- اختياري: مرشح الحجم – في حال وجود الكثير من الشوائب في التصوير، يمكن استخدام مرشح الحجم لإزالة القطع الاصطناعية. اختر 'Add Operation'، ثم ابحث عن 'Object Feature Filter'. اضبط الإدخال (input) على Blob finder (nuclei) (أو أي اسم مجموعة آخر من الخطوة 6.7). اضبط 'is type' على 'any'. من القائمة المنسدلة، اختر Volume (volume) واضبط القيمة على > 6 µm3اختر "إضافة مرشح" (Add filter). من القائمة المنسدلة، اختر الحجم (Volume) وقم بتعيين القيمة إلى <3000 µm3قم بتسمية المخرج، على سبيل المثال "nuclei". قم بتشغيل مسار العمل وصولاً إلى هذه الخطوة عن طريق تحديد زر الخطوط الثلاثة في الوحدة والنقر على "run pipeline to here".
ملاحظة: يمكن أيضاً استخدام مرشحات الحجم للقنوات الأخرى إذا لزم الأمر. قم بتحسين قيم "أكبر من" و"أصغر من" لضمان اختيار جميع الأجسام الإيجابية مع استبعاد الحطام الخلوي. - لتحديد النوى التي تعطي نتيجة إيجابية لعلامة أخرى واحدة، استخدم أداة التقاطع (intersect tool). اختر "إضافة عملية" (Add operation) وابحث عن أداة "المقصورات" (compartments). في قائمة المنسدلة الأولى، أضف مخرجات النوى (على سبيل المثال: blob finder (nuclei) أو "النوى" المفلترة حجمياً (volume filtered ‘nuclei’)) وتأكد من تحديد الزر الموجود على يسار المربع. في القائمة المنسدلة المدرجة، اختر القناة المطلوبة (على سبيل المثال: blob finder (channel 2)). قم بتسمية المخرجات، على سبيل المثال: "نوى مع القناة 2" (nuclei with channel 2). كرر هذه الخطوات لجميع العلامات المطلوبة.
- للعثور على النوى الإيجابية لعلامتين أو أكثر من العلامات الأخرى، اختر "إضافة عملية" (Add operation) ثم ابحث عن أداة "مرشح سمات الكائنات" (Object Feature Filter). حدد المدخلات لتكون علامة النوى (على سبيل المثال: "nuclei"، type= any)، وأضف المرشحات من الخطوة السابقة بعد "لديه علامة" (Has tag)، مثل "النوى ذات القناة 2" (Nuclei with channel 2) و"النوى ذات القناة 3" (Nuclei with channel 3). قم بتسمية المخرجات، على سبيل المثال: "النوى ذات القناة 2 والقناة 3" (Nuclei with channel 2 and channel 3). قم بتشغيل مسار العمل حتى هذه الخطوة.
- قم بإنشاء سمات مخصصة لحساب النوى عن طريق اختيار أيقونة جدول البيانات في الشريط العلوي، ثم اختيار "create"، ثم اختيار "object count". امنح السمة تسمية مناسبة (مثل: nuclei count)، واختر المخرج المراد قياسه كمياً (مثل: nuclei) من قائمة العلامات (tag menu). كرر هذه الخطوة لكل مجموعة يراد قياسها كمياً.
- أنشئ مجموعات كائنات عن طريق اختيار "إضافة عملية" (Add operation) ثم "إنشاء مجموعات كائنات" (Create object groups). حدد كل مجموعة سيتم استخدامها في التحليلات ضمن المدخلات. صنف المخرجات باسم "إنشاء مجموعات كائنات" (Create object groups). قم بتشغيل خط المعالجة حتى هذه الخطوة.
- قم بتصدير أعداد الملخص عن طريق اختيار "إضافة عملية" (Add operation) ثم "تصدير ميزات الكائن" (Export object features). من المدخلات، اختر "إنشاء مجموعات الكائنات" (create object groups). حدد دليلاً لحفظ البيانات. يكون الوضع "جدول واحد" (single table). انقر فوق الميزات، واختر الميزات المخصصة التي تم إنشاؤها في الخطوة 6.13.
- قم بتصدير تفاصيل النوى عن طريق اختيار "إضافة عملية" (Add operation) ثم "تصدير سمات الكائنات" (Export object features). في المدخلات، اختر عملية كشف النوى التي تم إنشاؤها في الخطوة 6.7 (أو 6.10 في حال استخدام مرشح الحجم). اختر دليلاً لحفظ البيانات. يكون الوضع "جدول واحد" (single table). انقر فوق السمات، واختر "الكثافات" (intensities) لكل قناة (#1، #2، #3، إلخ) والسمات الأخرى المراد تصديرها، مثل الحجم (volume).
- قم بتخزين الكائنات عن طريق تحديد الكائنات المطلوبة للتصور/التحليل في مربع "تخزين الكائنات" (store objects).
- احفظ مسار العمل عن طريق عكس جميع الخطوات، واختيار الخطوط الثلاثة في أعلى اليمين، والنقر على "تصدير" (Export). اختر "المجلد" (folder) لحفظ "مسار العمل" (pipeline) فيه، ثم قم بالحفظ.
- لتشغيل مسار تحليل بنظام الدفعات، قم بإعادة تحميل برنامج Arivis. من الشريط العلوي، اختر "Analysis" ثم "Batch analysis". من النافذة التي ستظهر، اختر مسار التحليل الذي تم حفظه في الخطوة 6.18. من قائمة "files"، اختر الملفات المراد تحليلها ثم اضغط "ok". وبمجرد تحميل الملفات، يمكن حذف أي طرق عرض غير مرغوب فيها، ثم اختر "Ok". في الشاشة التالية، حدد المجلد الذي سيتم حفظ البيانات فيه، ثم انقر على "Run". سيتم حفظ البيانات تلقائياً في مجلد المخرجات المحدد.
يوضح الشكل 1 نظرة عامة على سير العمل.
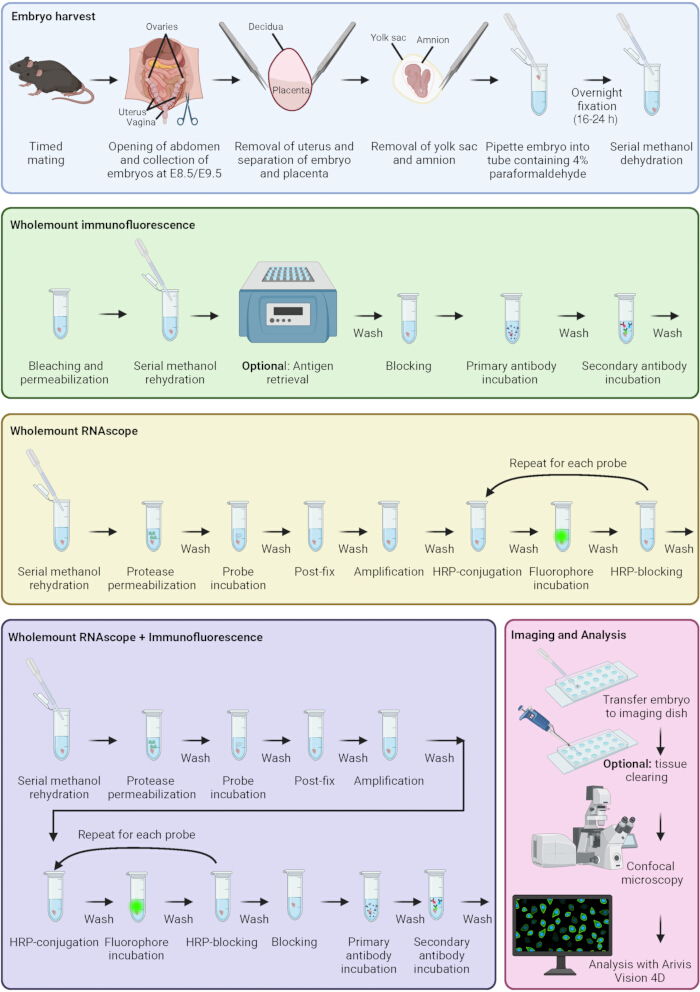
الشكل 1: بروتوكول صبغ التألق المناعي وRNAscope. مخطط يمثل المراحل الرئيسية لحصاد الأجنة، والتألق المناعي، وRNAscope، والجمع بين التألق المناعي وRNAscope، وتصوير العينات، والتحليل. تشير المربعات الملونة إلى مراحل البروتوكول المختلفة. تم إنشاؤه بواسطة BioRender. Sparrow, D. (2026) https://BioRender.com/q6rmax8 يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
النتائج
صُبغت أجنة في المرحلة E8.5 باستخدام الفلورة المناعية وفقاً لهذا البروتوكول لتحليل عدد خلايا العرف العصبي المهاجرة التي كانت في طور G2/M من الدورة الخلوية. صُبغت العينات باستخدام أجسام مضادة تستهدف PHH3 لتصور طور G2/M من الدورة الخلوية، وSOX10 لتصور خلايا العرف العصبي المهاجرة. كما صُبغت الأجنة بأجسام مضادة ثانوية مناسبة. وصُبغت النوى باستخدام DAPI. تم تصوير العينات باستخدام مجهر Olympus SpinSR confocal ذو القرص الدوار مع عدسة شيئية 10x (NA = 0.4). تم الحصول على الصور باستخدام كاميرا Hamamatsu Orca Fusion BT وقرص دوار بفتحة دبوس 50 µm. التُقطت الصور باستخدام وظيفة التبليط والدمج (tile and stitch) كمجموعات Z stacks، بتباعد Z قدره 1.9 µm. يتطلب انفصال خلايا العرف العصبي وهجرتها اللاحقة عبر الانتقال الظهاري المتوسطي (EMT) أن تكون خلايا العرف العصبي قبل المهاجرة في مرحلة S أو G2/M من الدورة الخلوية20. هنا، تمكنا من تصور الخلايا في طور G2/M من الدورة الخلوية، والتي يشير إليها صبغ PHH3 (باللون الأخضر)، ضمن مجموعة خلايا العرف العصبي المهاجرة، التي يشير إليها SOX10 (باللون الأرجواني) (الشكل 2A). يمكن قياس عدد خلايا العرف العصبي المهاجرة في طور G2/M في الأجنة الضابطة وتلك المعرضة للمعالجة لتحديد ما إذا كانت معالجتنا تؤثر على عدد خلايا العرف العصبي المهاجرة في G2/M، وبالتالي ما إذا كانت معالجتنا قد تعيق أيضاً انفصال العرف العصبي عبر EMT. كانت بعض الأجنة تحتوي على بقايا كيس محي ملتصق ناتج عن عملية التشريح (الشكل 2A’، رأس السهم الأحمر). يتأثر كيس المحي المتبقي بالصبغ بواسطة الأجسام المضادة الثانوية المضادة للفئران، المنتشرة في هذه العينة، لأن الجسم المضاد PHH3 تم إنتاجه في فأر. وبالتالي، يتفلور كيس المحي بالكامل بشكل ساطع باستخدام الفلوروفور المقترن بالجسم المضاد المضاد للفئران. في هذا المثال الصارخ، يمكن أن يؤثر الصبغ غير النوعي على التحديد الكمي لـ PHH3، وبالتالي، يجب استبعاد هذه العينة من التحليل. علاوة على ذلك، فإن استخدام الأجسام المضادة المضادة للفئران يترك "خطاً" غير نوعي مجاوراً للأنبوب القلبي في أجنة E8.5 (الشكل 2A’، رأس السهم الأحمر)). يجب مراعاة هذه المنطقة عند قياس الإشارة الناتجة عن جسم مضاد أولي تم إنتاجه في فأر.
تم صبغ أجنة في المرحلة E9.5 باستخدام التألق المناعي وفقًا لهذا البروتوكول لفحص بنية الأوعية الدموية وتوزيع الخلايا السلفية القلبية. صُبغت العينات باستخدام أجسام مضادة تستهدف ISLET1 (ISL1) لتصوير الحقل القلبي الثاني، وSOX10 لتصوير خلايا العرف العصبي المهاجرة، وENDOMUCIN (EMCN) لتصوير الخلايا البطانية الوريدية والشعيرية، بالإضافة إلى أجسام مضادة ثانوية مناسبة. كما صُبغت النوى باستخدام DAPI. واُستخدمت تقنية ترويق الأنسجة للحصول على عمق تصوير أفضل. صُوّرت العينات باستخدام مجهر القرص الدوار Olympus SpinSR بـعدسة شيئية 10x (NA = 0.4). في المرحلة E9.5، نلاحظ هجرة خلايا العرف العصبي القلبية، التي تشكل جزءًا من قوس الأبهر (SOX10، باللون الأصفر)، والخلايا السلفية للحقل القلبي الثاني (ISL1، باللون الأخضر)، التي تشكل أجزاءً من الأذين، ومسار التدفق الخارج، والبطين الأيسر21 (الشكل 2B). يُعد اضطراب الخلايا السلفية القلبية محركًا رئيسيًا لأمراض القلب الخلقية2,23. وباستخدام هذه الطريقة، يمكننا تصوير نمط وتعداد الخلايا السلفية القلبية. وتتمثل المرحلة التالية في مقارنة نمط الخلايا السلفية القلبية بين مجموعات الضبط والمجموعات المعالجة لتحديد ما إذا كان التدخل يؤدي إلى اضطراب الهجرة أو فقدان أنواع خلوية رئيسية.
لتحديد العلاقة بين مرحلة خلايا العرف العصبي وإشارات Wnt، صُبغت أجنة في عمر E8.5 باستخدام تقنية RNAscope وفقاً لهذا البروتوكول لفحص خلايا العرف العصبي في مراحل مختلفة من الهجرة والتمايز، بالإضافة إلى علامة لإشارات Wnt. استُخدمت مسابير تشير إلى حدود الصفيحة العصبية، التي تنبثق منها خلايا العرف العصبي (Msx1)، وخلايا العرف العصبي المهاجرة (Sox10)، وتمايز خلايا العرف العصبي (Dlx2)، وقورنت بمسبار يشير إلى إشارات Wnt (Sp5). استُخدمت الفلوروفورات TSA-vivid 520 و570 و650، وOpal 780 لتصوير المسابير. صُوّرت العينات باستخدام مجهر Evident FV40 بعدسة شيئية 10x (NA=0.4)، وثقب دبوسي (pinhole) بحجم 14 µm، وحجم بكسل 621 nm. التُقطت الصور باستخدام وظيفة التبليط والدمج (tile and stitch) على شكل مساحات Z (Z stacks)، بتباعد Z قدره 4.32 µm. تشغل حدود الصفيحة العصبية (Msx1، اللون الأخضر) وخلايا العرف العصبي المهاجرة (Sox10، اللون الأرجواني) مناطق متمايزة في الرأس، مع وجود بعض التداخل عندما تبدأ الخلايا في الهجرة من الأنبوب العصبي (الشكل 3A). تتوضع بعض مناطق خلايا العرف العصبي المهاجرة في نفس موقع Dlx2 (اللون السماوي)، مما يشير إلى أن بعض الخلايا تتقدم نحو التمايز القحفي الوجهي (الشكل 3A). تشغل إشارات Wnt (Sp5، اللون الأصفر) مناطق من حدود الصفيحة العصبية، وهو أمر وثيق الصلة لأن تعديل إشارات Wnt مطلوب لانفصال وتمايز خلايا العرف العصبي24,25، كما تشغل أيضاً منطقة متمايزة مجاورة لخلايا العرف العصبي المهاجرة (الشكل 3A).
استهدف إجراء مزيد من الصباغة دراسة العلاقة بين هجرة خلايا العرف العصبي ومسار إشارات Wnt في اليوم الجنيني 9.5 (E9.5)، وذلك عن طريق الصباغة للكشف عن مؤشرات حالة العرف العصبي ومسار إشارات Wnt. وقد استُخدمت مسابير تشير إلى حدود الصفيحة العصبية (Msx1) وخلايا العرف العصبي المهاجرة (Sox10) واستُخدمت وقورنت بمسبار يشير إلى إشارات Wnt (Sp5استُخدمت الفلوروفورات TSA-vivid 520 و570 و650 لتصور المسابر. وصُوّرت العينات باستخدام مجهر القرص الدوار Olympus SpinSR بعدسة شيئية بقوة تكبير 10x (الفتحة العددية NA = 0.4). ويمكننا هنا رؤية حدود الصفيحة العصبية (Msx1، الأخضر)، متميزة عن خلايا العرف العصبي المهاجرة (Sox10 أرجواني) (الشكل 3B). إشارات Wnt (Sp5(الأصفر)، ويمكن رؤيته بوضوح في المنطقة الظهرية للجنين، حيث تنفصل خلايا العرف العصبي للجذع، وكذلك في مناطق متميزة في الرأس، حول الـ 1يرجى تزويدي بالنص المراد ترجمته. و2ند القوس الخيشومية، وأسفل مسار التدفق، وداخل الحويصلة الأذنية (الشكل 3بإن مقارنة التوزيع المكاني لخلايا العرف العصبي وإشارات Wnt بين مجموعتي الضبط والمعالجة باستخدام هذه الطريقة ستسمح لنا بتحديد ما إذا كان تدخلنا يؤدي إلى اضطراب في انفصال خلايا العرف العصبي وهجرتها، وما إذا كان أي اضطراب ناتجاً عن تغيرات في إشارات Wnt.
لتحديد حالة الدورة الخلوية للخلايا في حدود الصفيحة العصبية، استخدمنا هذا البروتوكول للجمع بين التألق المناعي وتلوين RNAscope. تم استخدام مسبار RNAscope يشير إلى حدود الصفيحة العصبية (Msx1). صُبغت العينات باستخدام أجسام مضادة تستهدف PHH3 و PCNA لتصور مرحلتي G2/M و S من الدورة الخلوية، على التوالي. صُبغت الأجنة لاحقاً بأجسام مضادة ثانوية مناسبة، كما صُبغت النوى بـ DAPI. صُورت العينات باستخدام مجهر القرص الدوار Olympus SpinSR بعدسة شيئية 10x (NA = 0.4) (الشكل 4A،B)، أو مجهر بؤري Evident FV40 بعدسة شيئية 10x (NA = 0.4)، وثقب دبوسي 127 µm، وحجم بكسل 31 nm. (الشكل 4B’). يمكننا هنا رؤية خلايا في كل من مرحلة G2/M (PHH3، باللون الأصفر) ومرحلة S (PCNA، باللون الأرجواني) متداخلة مع حدود الصفيحة العصبية (الشكل 4A). وباستخدام هذه الطريقة، يمكننا قياس نسبة الخلايا الموجودة ضمن حدود الصفيحة العصبية في كل مرحلة من مراحل الدورة الخلوية وتحديد ما إذا كانت هذه النسب قد تغيرت بفعل مجموعات المعالجة لدينا. ومما يلاحظ في هذا الجنين وجود ثقوب ناتجة عن تلف أثناء التشريح بسبب المناولة المفرطة للجنين باستخدام ملاقط دقيقة. وهذا يؤكد الحاجة إلى توخي الحذر أثناء التشريح لمنع التلف، خاصة في المرحلة E8.5 عندما تكون الأجنة هشّة للغاية.
يمكن أن يؤدي الدمج بين تقنية RNAscope والفلورة المناعية إلى ظهور صبغة مسبار RNAscope بشكل باهت مقارنةً بإجراء RNAscope بمفرده. وعندما يقترن ذلك بجسم مضاد أولي يظهر فلورة ساطعة جداً باستخدام فلوروفور قريب (مثل Fluorescein و Cy3)، فقد يؤدي ذلك إلى حدوث تداخل في الإشارة (bleed-through) من القناة الأكثر سطوعاً إلى القناة الأكثر خفوتاً (الشكل 4B). ولتجنب ذلك، يمكن استخدام تركيز أكثر تخفيفاً للجسم المضاد شديد السطوع، أو اختيار فلوروفورات أكثر تمايزاً من الناحية الطيفية، أو تغيير معاملات التصوير في العينات. وتتميز مجهريات القرص الدوار (Spinning disk microscopes) بسرعتها العالية في تصوير الأجنة، ولكن نظراً لأنها تستخدم مرشحات انبعاث تمرير نطاقي (band-pass emission filters) بنوافذ انبعاث ثابتة، فلا توجد طريقة لتضييق نوافذ الكشف ديناميكياً لتتطابق مع فلوروفورات محددة. أما عند استخدام مجهر المسح النقطي (point-scanning microscope)، مثل Evident FV40، فيمكن للمشغل تضييق نافذة الكشف بدقة النانومتر، مما يسمح بتقليل التداخل في الإشارة عند استخدام فلوروفورات تتداخل أطياف انبعاثها بشكل طفيف (الشكل 4B’).
لتحديد نسب الخلايا الموجودة في مراحل مختلفة من الدورة الخلية في أجنة في اليوم الجنيني 8.5 (E8.5)، استخدمنا هذا البروتوكول لتحليل نسبة النوى وكثافة الإشارة في كل من طور S وطور G2/M من الدورة الخلوية. صُبغت العينات باستخدام أجسام مضادة تستهدف PHH3 وPCNA لتصور طوري G2/M وS من الدورة الخلوية، على التوالي. كما صُبغت الأجنة بأجسام مضادة ثانوية مناسبة، وصُبغت النوى بصبغة DAPI. صُوِّرت العينات باستخدام مجهر القرص الدوار Olympus SpinSR مع عدسة شيئية بقوة 10x (الفتحة العددية NA = 0.4). واستُخدم برنامج Zeiss Arivis Pro لتحديد جميع النوى، والنوى الإيجابية لـ PHH3، والنوى الإيجابية لـ PCNA، والنوى الإيجابية المزدوجة (الشكل 5أ). وباستخدام هذه الطريقة، تمكنا من مقارنة نسب الخلايا في طور G2/M (PHH3+) و S (PCNA+(مراحل الدورة الخلوية)الشكل 5ب)، وكثافة صبغ PHH3 أو PCNA في كل نواة على حدة (الشكل 5ج). ونلاحظ أن نسبة PCNA كانت أعلى قليلاً+ النوى في منطقة القلب مقارنة بالرأس والجنين بأكمله (الشكل 5بعلاوة على ذلك، احتوى الرأس على نسبة أعلى من PHH3+ والنوى المصبوغة بصبغتين مقارنةً بالقلب والجنين بأكمله (الشكل 5ب). ولم تكن هناك فروق ظاهرة في كثافة PHH3 أو PCNA بين المناطق (الشكل 5ج). هذه البيانات مستمدة من جنين ممثل واحد (ن = 1)، وهي معروضة لتوضيح سير عمل التحليل؛ ولم يتم إجراء أي تحليل إحصائي استدلالي. وتتيح هذه الطريقة مجتمعةً تحديد أنماط انتشار الدورة الخلوية في مرحلة نمائية حاسمة لتطور القلب والوجه والجمجمة. كما ستسمح لنا هذه الطريقة بتحديد ما إذا كان علاجنا يؤثر على انتشار الدورة الخلوية في مناطق مختلفة من الجنين.
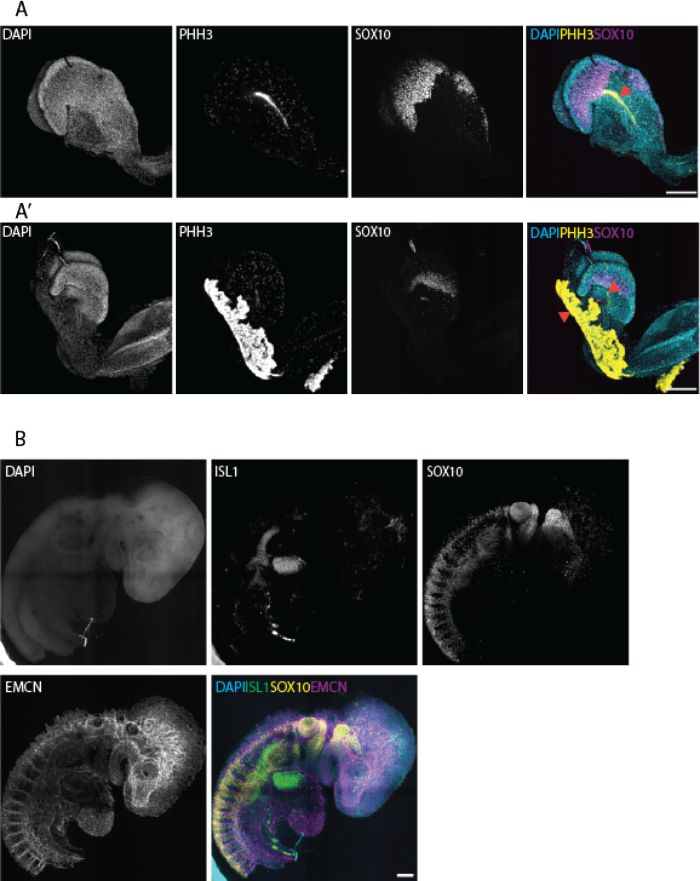
الشكل 2: صبغ مناعي فلوري للبروتينات في أجنة في المراحل E8.5 و E9.5. (A, A’) تم صبغ أجنة الفئران في المرحلة E8.5 مناعياً بالفلور باستخدام PHH3 لتصور الخلايا في طور G2/M من الدورة الخلوية، و SOX10 لتصور خلايا العرف العصبي المهاجرة، و DAPI لتصور النوى. N = 1 جنيناً من تجربة واحدة. (B) تم صبغ أجنة في المرحلة E9.5 باستخدام ISL1 لتصور أسلاف الحقل القلبي الثاني، و SOX10 لتصور خلايا العرف العصبي المهاجرة، و EMCN لتصور الأوعية الدموية الشعيرية والوريدية، و DAPI لتصور النوى. تشير رؤوس السهام الحمراء إلى صبغ غير نوعي في كيس المح، و صبغ غير نوعي داخل الجنين ناتج عن الأجسام المضادة الثانوية المضادة للفئران (n = 15 جنيناً من تجربة واحدة). شريط المقياس = 20 µm. DAPI: 4′,6-diamidino-2-phenylindole؛ PHH3: Phosphohistone H3؛ EMCN: Endomucin. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
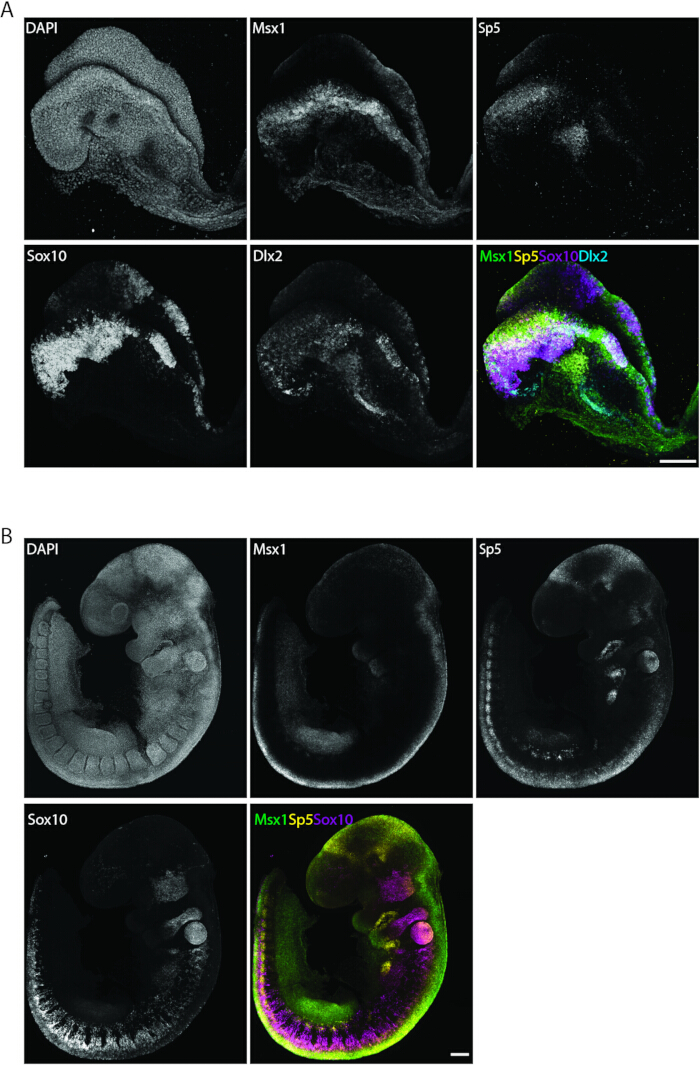
الشكل 3: صبغ النسخ في أجنة في المرحلتين E8.5 وE9.5 باستخدام تقنية RNAscope. (A) تم صبغ أجنة في المرحلة E8.5 باستخدام تقنية RNAscope بمجسات تستهدف Msx1 لتصوير حدود الصفيحة العصبية، وSox10 لتصوير العرف العصبي المهاجر، وDlx2 لتصوير العرف العصبي المتمايز، وSp5 لتصوير تأشير Wnt. العدد n = 13 جنيناً من تجربة واحدة. (B) تم صبغ أجنة في المرحلة E9.5 باستخدام تقنية RNAscope بمجسات تستهدف Msx1 لتصوير حدود الصفيحة العصبية، وSox10 لتصوير العرف العصبي المهاجر، وSp5 لتصوير تأشير Wnt. العدد n = 4 أجنة من تجربة واحدة. شريط المقياس = 20 µm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
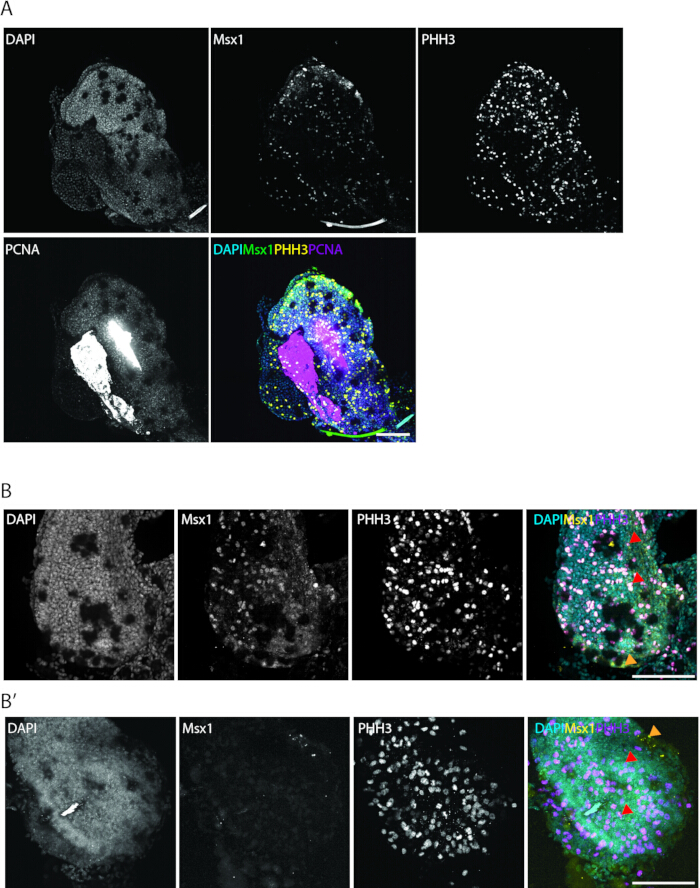
الشكل 4: صبغ مناعي فلوري مدمج وتقنية RNAscope في أجنة في المرحلة E8.5. (A, B, B’) تم صبغ أجنة في المرحلة E8.5 باستخدام تقنية RNAscope بمسابير تستهدف Msx1 لتصوير حدود الصفيحة العصبية، وبواسطة الصبغ المناعي الفلوري لـ PCNA لتصوير الخلايا في طور S، وأجسام مضادة لـ PHH3 لتصوير الخلايا في طور G2/M من الدورة الخلوية. تشير رؤوس السهام البرتقالية إلى صبغ Msx1 محدد، وتشير رؤوس السهام الحمراء إلى تداخل الفلورة (B)، أو صبغ PHH3 محدد دون تداخل في قناة Msx1 (B'). العدد N = جنينان من تجربة واحدة. شريط المقياس = 20 µm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
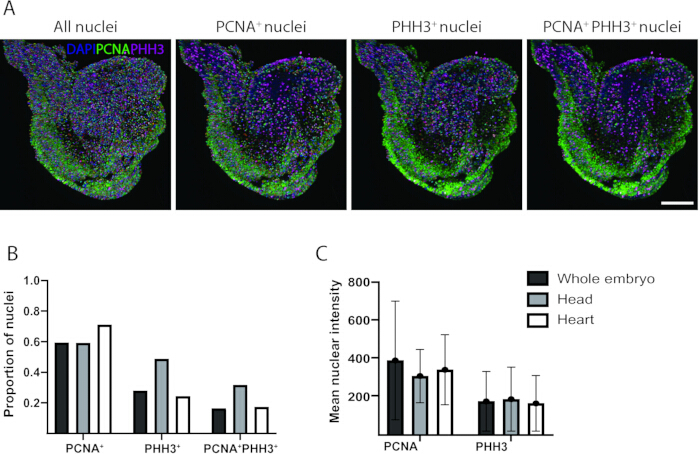
الشكل 5: تحليل مرحلة الدورة الخلوية في أجنة E8.5 باستخدام Arivis Pro. (A) تم صبغ أجنة الفأر في المرحلة E8.5 باستخدام التألق المناعي لـ PCNA لتصور الخلايا في طور S من الدورة الخلوية (باللون الأخضر)، وPHH3 لتصور الخلايا في طور G2/M من الدورة الخلوية (باللون الأرجواني)، وDAPI لتصور النوى (باللون الأزرق). تم تراكب الأجسام ثلاثية الأبعاد المكتشفة (كرات متعددة الألوان) وتصورها باستخدام عارض 4D في Zeiss Arivis Pro. (B) يوضح الرسم البياني نسبة النوى PCNA+ وPHH3+ والنوى إيجابية الصبغ المزدوج في الجسم بأكمله والرأس والقلب لجنين واحد. (C) يوضح الرسم البياني متوسط كثافة صبغ PCNA وPHH3 لكل نواة في الجسم بأكمله والرأس والقلب لجنين واحد. تمثل الدوائر المتوسط؛ وتمثل أشرطة الخطأ الانحراف المعياري لجميع النوى ضمن عينة واحدة. تم إنشاء الرسوم البيانية باستخدام GraphPad Prism. شريط المقياس = 20 µm. أُجري التحليل الكمي على n = 1 جنين. لم يتم إجراء أي إحصاءات استنتاجية. تشير أشرطة الخطأ إلى الانحراف المعياري بين النوى الفردية. 3D: ثلاثي الأبعاد؛ DAPI: 4′,6-diamidino-2-phenylindole. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
المناقشة
نصف هنا طريقة محسنة لتحليل التعبير الجيني والبروتيني مكانياً داخل أجنة كاملة في المرحلتين E8.5 وE9.5. وتتميز هذه الطرق بدقة مكانية أفضل وقدرة أعلى على تعدد الإرسال مقارنة بالطرق التقليدية للتهجين الموضعي in situ للحمض النووي الريبي (RNA) والفلورة المناعية للمقاطع النسيجية. يعتمد هذا البروتوكول على بروتوكولات حديثة موجودة لفحص مسارات النمو في أجنة الفئران. وقد استخدم بروتوكول حديث تقنية RNAscope والتلوين بالفلورة المناعية لدراسة إشارات Wnt في الأجنة، ولكن تم تلوين مقاطع نسيجية بدلاً من أجنة كاملة26. وفي دراسة حديثة أخرى، تم إجراء تلوين RNAscope وفلورة مناعية على أجنة فئران كاملة في المراحل E8.5–E10.527، إلا أن المؤلفين لم يجمعوا بين تقنيتي التلوين، كما لم يتم تلوين قناة RNAscope رابعة باستخدام مجسات C4 وفلوروفورات Opal 780. سبق وصف الجمع بين الفلورة المناعية وRNAscope في أجنة كاملة في المرحلة E3.5، حيث يتم إجراء RNAscope بعد إتمام بروتوكول الفلورة المناعية28. وبينما لم نجرب هذا البروتوكول بدقة في أجنة في مراحل متأخرة، فقد حصلنا على تلوين أجسام مضادة ضعيف عند إدراج تلوين RNAscope بين حضانات الأجسام المضادة الأولية والثانوية في بروتوكول الفلورة المناعية الخاص بنا في أجنة E8.5. ويرجع ذلك على الأرجح إلى الحاجة لاستخدام حضانة البروتياز عند إجراء RNAscope على أجنة أكبر حجماً، وهو أمر لم يكن مطلوباً في الدراسة التي استخدمت أجنة فئران في المرحلة E3.5. إذ يمكن أن تؤثر حضانة البروتياز على سلامة الأجسام المضادة المرتبطة، وبالتالي فإن تبديل ترتيب RNAscope والفلورة المناعية من غير المرجح أن ينجح في هذا النظام. وفي دراسة حديثة أخرى على الألياف العضلية، تم الجمع بين البروتوكولين من خلال إجراء RNAscope قبل التلوين بالفلورة المناعية29. وبشكل مشابه لهذا البروتوكول، أجرت تلك الدراسة RNAscope قبل الفلورة المناعية؛ ومع ذلك، لم يتم التحقق من صحة طريقتهم في أجنة فئران كاملة، ولم يجروا RNAscope يتضمن قناة RNAscope إضافية عن طريق التلوين بمجسات C4 وفلوروفور Opal 780.
تتمتع القدرة على صبغ الأجنة الكاملة باستخدام تعدد الإرسال بتطبيقات واسعة النطاق في علم الأحياء النمائي لتمكين رسم خرائط لنسخ ورسائل بروتينية رئيسية، وتحديد أنواع الخلايا السلفية أو مسارات التأشير النمائي في الأجنة في مراحل مختلفة. وقد تمكنا من استخدام هذه التقنيات لرسم خرائط توزيع الخلايا السلفية القلبية (الشكل 2B)، وخلايا العرف العصبي في مراحل مختلفة من الهجرة والتمايز (الشكل 3)، وتأشير Wnt (الشكل 3)، ومرحلة الدورة الخلوية (الشكل 2، الشكل 4، الشكل 5). ومن خلال تعديل المجسات والأجسام المضادة المستخدمة، يمكن استخدام هذه التقنيات لفحص أي أنواع من الخلايا أو جزيئات التأشير ذات الأهمية طالما كانت موجودة في الأجنة في هذه المرحلة. وعلى الرغم من تركيزنا على E8.5 و E9.5 في هذا البروتوكول، فمن الممكن أيضاً صبغ الأجنة الأصغر أو الأكبر سناً عن طريق تعديل نفاذية الأنسجة، وأوقات الحضانة، وترويق الأنسجة.
ومع ذلك، أدت هذه القدرة المحسنة على تعدد الإرسال (multiplexing) للتعبير البروتيني والنسخي في الأجنة الكاملة إلى تحديات إضافية. أولاً، يستغرق إجراء التحليل على العينات الكاملة وقتاً طويلاً مقارنة بالتألق المناعي (immunofluorescence) وتقنية RNAscope على المقاطع النسيجية، والتي يمكن إجراؤها عادةً خلال 1-2 يوم بدلاً من عدة أيام. علاوة على ذلك، يتطلب استخدام العينات الكاملة مراعاة دقيقة لمعايير الفحص المجهري لضمان الحصول على عمق ودقة كافيين للعينة. هناك حاجة إلى مجهر يمكنه التصوير عبر أنسجة يصل سمكها إلى 70 µm، كما يجب استخدام تقنية ترويق الأنسجة (tissue clearing) في الأجنة الأكبر حجماً، وإلا قد يتم إغفال التراكيب الموجودة في عمق العينة. بالإضافة إلى ذلك، ونظراً لسمك العينات، فإن التصوير باستخدام مجهر المجال الواسع (widefield microscope) سيؤدي إلى تصوير كمية كبيرة من الضوء القادم من خارج المستوى البؤري؛ لذا يُفضل استخدام المجهر البؤري (confocal microscope) نظراً لقدرته على إزالة الإشارات من خارج المستوى البؤري، وبالتالي يمكنه التصوير عبر العينة مع استبعاد أي إشارة خارج المستوى. بالإضافة إلى ذلك، غالباً ما يتيح المجهر البؤري ذو القرص الدوار (spinning disk confocal microscope) أوقاتاً أسرع لالتقاط الصور، ولكنه يضحي بالتحكم الدقيق في الكشف عن التألق مقارنة بالمجهر البؤري ذو المسح النقطي (point-scanning confocal microscope). كما يمكن أن يمثل حجم الأجنة تحدياً، حيث لا تمتلك العديد من المجاهر مجال رؤية واسعاً بما يكفي لتصوير الجنين دون استخدام المسح المقطعي (tile-scanning). وقد يؤدي ذلك إلى ظهور عيوب في دمج الصور (stitching artifacts) داخل الصورة (على سبيل المثال، الشكل 2B). كما قد يؤدي تعدد الإرسال في العينات إلى تداخل الإشارات (bleed-through) بين القنوات (على سبيل المثال، الشكل 4B)، وهو ما يمكن الحد منه عن طريق اختيار مجهر بؤري ذو مسح نقطي حيث يمكن تضييق نوافذ الكشف، وذلك في الحالات التي يكون فيها للفلوروفورات تداخلات طفيفة في أطياف الانبعاث. ويعد استخدام الفلوروفور Opal 780 مفيداً لتعدد إرسال المزيد من الأهداف في عينة واحدة؛ ولكن يتطلب الكشف عن هذا النظام مجهراً لديه القدرة على التصوير في الأشعة تحت الحمراء القريبة. وهذه القدرة غير متوفرة في غالبية المجاهر الضوئية.
يتطلب تثبيت العينات بغرض التصوير أيضاً دراسة متأنية. فعندما تُترك العينات تطفو بحرية، كما هو الحال عند التصوير في شريحة غرفية متعددة الفجوات، لا تكون العينات دائماً عند الزاوية نفسها تماماً للتصوير. وقد يؤدي ذلك إلى اختلافات في كثافة التصبيغ اعتماداً على الأجزاء من الجنين الأكثر قرباً من الكاميرا/الكاشف، مما قد يسبب تحديات عند إجراء تحليل الكثافة في المراحل اللاحقة. وهناك مشكلة أخرى في استخدام الشرائح الغرفية متعددة الفجوات وهي أن حافة الفجوة قد تقع ضمن المجال الذي يتم تصويره، مما قد يؤدي إلى ظهور تشوهات في الصورة. أما تثبيت الجنين، كما هو الحال في الشريحة التجويفية، فيمكن أن يساعد في الحفاظ على التوجيه، ولكنه قد يجعل الجنين عرضة للتلف و/أو الضغط، مما يجعل تحليل حجم البنى تحدياً صعباً.
هناك عدة اعتبارات يجب مراعاتها عند اتباع هذا البروتوكول. فبالنسبة للوميض المناعي، يجب توخي الحذر أثناء استعادة المستضد لتجنب تفك الجنين، لا سيما عند تحليل الأجنة الصغيرة. ولتجنب ذلك، قد يكون من الممكن استخدام طرق أخرى لاستعادة المستضد، مثل استخدام محلول منظم بديل مثل Tris/EDTA أو استخدام طريقة استعادة تحللية للبروتين. وقد تستفيد الأجنة الأصغر أو الأكبر حجماً من تحسين أوقات تحضين الأجسام المضادة. كما يلزم النظر بعناية في الأجسام المضادة الأولية، حيث يتم إنتاج العديد من الأجسام المضادة في الفئران، إلا أن استخدام الأجسام المضادة المضادة للفئران يمكن أن يرتبط بالكيس المحي المتبقي ويصدر وميضاً قوياً. ويمكن ملاحظة ذلك باستخدام أجسام مضادة ثانوية مضادة للفئران مرتبطة بـ AlexaFluor 48 (الشكل 2) و AlexaFluor 647 (الشكل 4). لم يتم اختبار فلوروفورات أخرى في مختبرنا، ولكن قد تكون لهذه الأخيرة شدات وميض مختلفة، مما يتطلب مزيداً من التحسين. ولا يظهر هذا التأثير في القنوات التي استُخدمت فيها أجسام مضادة مضادة للأرانب (الشكل 2, الشكل 4, الشكل 5) أو أجسام مضادة مضادة للجرذان (الشكل 2B)؛ لذا، يُوصى باستخدام أجسام مضادة أولية مُنتجة في أنواع أخرى كلما أمكن ذلك.
فيما يتعلق بتقنية RNAscope، من الضروري للغاية تحسين خطوات حضانة البروتياز، حيث إن الوقت القصير جدًا قد يؤدي إلى عدم تغل المسابير بشكل كافٍ، بينما قد يؤدي الوقت الطويل جدًا إلى تفك العينة بالكامل. عند تحسين أوقات حضانة البروتياز، نوصي بتعديل المدة بمقدار دقيقة واحدة في كل مرة. ومن أفضل الممارسات أيضًا استخدام ضوابط مناسبة لتحديد ما إذا كان المسبار أو الجسم المضاد قد عمل أم لا. وتتمثل الضابطة السلبية في استخدام جنين في مرحلة مكافئة وتم صبغه في نفس الوقت دون إضافة مسبار/جسم مضاد أولي، أو استخدام ضابط IgG isotype للفلورة المناعية أو مسبار ضابط سلبي لتقنية RNAscope، على التوالي، للتأكد من أن الصبغ الملاحظ حقيقي. كما يمكن أن تكون الضوابط الإيجابية، المتمثلة في أنسجة ذات حجم مكافئ ومعروفة بأنها تعبر عن الجين أو النسخة المطلوبة، مفيدة لتحديد ما إذا كانت عملية الصبغ قد نجحت.
بشكل عام، يُعد هذا البروتوكول طريقة قوية ومُحسّنة لتصور تعبير البروتين والنسخ في أجنة الفئران الكاملة عند المرحلتين E8.5 و E9.5، مع إمكانيات كبيرة لاستقصاء الآليات الخلوية والجزيئية في التطور الجنيني الطبيعي وفي الحالات المرضية.
الإفصاحات
يعلن المؤلفون عن عدم وجود تضارب في المصالح المالية.
شكر وتقدير
يتوجه المؤلفون بالشكر إلى الفريق العامل في مرفق التصوير الخلوي الأساسي (Cellular Imaging Core facility)، بمركز علم الوراثة البشرية في جامعة أكسفورد، لتقديم الدعم الفني في الفحص المجهري وتحليل الصور الواردة في هذه المخطوطة. كما يشكر المؤلفون الموظفين في الخدمات الطبية الحيوية بجامعة أكسفورد على دعمهم في رعاية الحيوانات وعمليات التزاوج الموقوت لإنتاج الأجنة.
تم توفير التمويل لهذا البحث من قبل زمالة كبار الباحثين في مؤسسة القلب البريطانية British Heart Foundation Senior Fellowship رقم FS/SBSRF/22/3102 (DBS)، وصندوق Additional Ventures Single Ventricle Fund (DBS)، وصندوق John Fell Fund، وجامعة أكسفورد 016065 (VSR)، والصندوق الداخلي للعلوم الطبية بجامعة أكسفورد 016707 (VSR).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| الأدوات البلاستيكية/الزجاجية | |||
| ماصات باستور سعة 3 مل، بولي إيثيلين منخفض الكثافة (LDPE)، مدرجة | Wheaton | 711116 | |
| أنابيب Eppendorf Safe-lock سعة 1.5 مل ميكروتيوب | Eppendorf | 0030 120.086 | |
| Ibidi µشريحة ذات 18 بئراً | Ibidi | 81817 | غطاء شريحة زجاجي 1.5H، غير معالج |
| غطاء شريحة Menzel X100 بمقاس 2x50 مم، سمك #1.5 (0.16-0.19 مم) | Thermo Scientific | 17284904 | |
| شرائح مجهرية ذات تجاويف | Marienfeld Superior | 1320000 | |
| أنبوب ميكروي محكم الإغلاق سعة 2 مل | Sarstedt | 72.695.500 | أنبوب 'Eppendorf' سعة 2 مل، بقاع مستدير |
| المحاليل/المحاليل المنظمة | |||
| 1x محلول تخفيف/حجب الأجسام المضادة | Akoya Biosciences | ARD101EA | |
| Ambion™ RnaseZap™ محلول إزالة تلوث الريبونوكلياز | Ambion | 9780.9782 | |
| محلول كاشف السترينات لإزالة الحجب | Vector Labs | H-30 | المصنفة كمحلول لإظهار المستضد، قائم على حمض الستريك |
| ثنائي ميثيل سلفوكسيد (DMSO) | Merck (Sigma-Aldrich) | D8418 | |
| محلول هانكس الملح المتوازن 10x | Merck (Sigma-Aldrich) | H4641 | |
| محلول بيروكسيد الهيدروجين | Merck (Sigma-Aldrich) | H109 | 30% (وزن/وزن) في H2O |
| ميثانول | Merck (Sigma-Aldrich) | 3213-2.5L-M | |
| مصل حمير طبيعي | Abcam | Ab7475 | تركيز المحلول الأم بنسبة 10%، تركيز نهائي 10% |
| مسحوق بارافورمالدهيد (PFA) | Merck (Sigma-Aldrich) | 158127-50g | خف المحلول بنسبة 4% في الماء. يتم التحضير داخل خزانة استخلاص الغازات. يُقلب المحلول على لوح تسخين مع إضافة كمية صغيرة من NaOH لتسهيل عملية الإذابة. الرقم الهيدروجيني (pH) 7.2-7.6. |
| محلول ملحي منظم بالفوسفات (PBS) | Merck (Sigma-Aldrich) | P417 | قرص واحد لكل 20 مل من الماء المقطر |
| طقم RNAscope 4-Plex المساعد لطقم كاشف الفلورة متعدد الإرسال الإصدار 2 | ACD (Bio-Techne) | 323120 | يحتوي على HRP-C4 ومحصر HRP |
| تقنية RNAscope™ طقم الكشف الفلوري متعدد الإشارات الإصدار 2 | ACD (Bio-Techne) | 323110 | يحتوي على Protease Plus و Protease III، بروتياز IV، بيروكسيد الهيدروجين، محلول TSA المنظم، Amp1/2/3، وHrp-C1/2/3، وحاصرات HRP، وDAPI |
| محلول منظم من سترات الصوديوم الملحية (SSC) بتركيز 20X | Fisher Bioreagents | BP-1325-1 | يُخفف إلى تركيز 0.2x باستخدام الماء المقطر |
| كاشف تصفية الأنسجة Cubic-R+(M) [للحيوانات] | Tokyo Chemical Industry | T3741 | |
| تريتون™ ١٠ × | Merck (Sigma-Aldrich) | X10 | |
| تويين (Tween)® 20 | Merck (Sigma-Aldrich) | P7949 | |
| فائق النقاء™ EDTA بتركيز 0.5 مولار، الرقم الهيدروجيني 8 | Invitrogen | 15575020 | |
| الأجسام المضادة الأولية | |||
| جسم مضاد لـ Endomucin (V.7C7) | Santa Cruz | SC-65495 | استخدم تخفيفاً بنسبة 1:50. |
| الأجسام المضادة Islet 1 وIslet 2 | بنك الهجينات للدراسات النمائية | 34.4DS-5 | يُخف بنسبة 50% في الجلسرول. يُستخدم بتخفيف 1:50. |
| جسم مضاد أحادي النسيلة للفأر لبروتين PCNA (PC10) | تكنولوجيا إشارات الخلية | 2586S | استخدم تخفيفاً بنسبة 1:500 |
| جسم مضاد أحادي النسيلة من الفأر P-histone H3 (Ser10) (6G3) | تقنية إشارات الخلايا | 9706S | استخدم تخفيفاً بنسبة 1:500 |
| P-histone H3 (Ser10) (D7N8E) XP® جسم مضاد أحادي النسيلة من الأرنب | تكنولوجيا إشارات الخلايا | 5348S | استخدم تخفيفاً بنسبة 1:50 |
| Sox10 (E6B6I) XP® جسم مضاد أحادي النسيلة من الأرنب | تكنولوجيا إشارات الخلية | 6961S | استخدم تخفيفاً بنسبة 1:500 |
| الأجسام المضادة الثانوية/صبغات النواة | |||
| AlexaFluor® Affinipure المقترن بـ 48® جسم مضاد من الحمار ضد IgG (H+L) للفأر | Jackson Immunoresearch | 715-545-151 | استخدم تخفيفاً بنسبة 1:500 |
| AlexaFluor® Affinipure المقترن بـ 647® جسم مضاد من الحمار ضد IgG (H+L) من الجرذ | Jackson Immunoresearch | 712-605-153 | استخدم تخفيفاً بنسبة 1:50 |
| AlexaFluor® Affinipure المقترن بـ 647® شظية F(ab')2 من الجسم المضاد IgG (H+L) لحمار مضاد للفأر | Jackson Immunoresearch | 715-606-150 | استخدم تخفيفاً بنسبة 1:50 |
| سيتوسين (Cy)™3 Affinipure® جسم مضاد من الحمير ضد IgG للأرانب (السلسلتين الثقيلة والخفيفة) | Jackson Immunoresearch | 711-165-152 | استخدم تخفيفاً بنسبة 1:50 |
| DAPI | Merck (Sigma-Aldrich) | D9542 | تُستخدم في 1 µg/ml |
| مسابير RNAscope | |||
| تقنية RNAscope® المسبار - Mm Sp5-C4 | ACD (Bio-Techne) | 405681-C4 | مسبار C4 |
| RNAscope® المسبار - Mm-Dlx2-C3 | ACD (Bio-Techne) | 5951-C3 | مسبار C3 |
| تقنية RNAscope® المسبار - Mm-Msx1 | ACD (Bio-Techne) | 421841 | المسبار C1 |
| RNAscope® المسبار - Mm-Sox10-C2 | ACD (Bio-Techne) | 435931-C2 | مسبار C2 |
| فلوروفورات RNAscope | |||
| حزمة كواشف Opal 780 | Akoya Biosciences | FP150101KT | يحتوي على كاشف Opal 780، وOpal TSA-DIG، ثنائي ميثيل سلفوكسيد (DMSO) |
| TSA-vivid™ الفلوروفور 520 | ACD (Bio-Techne) | 323271 | الآن ClariTSA™ الفلوروفور 520 |
| أجار تريبتيك سويولوجي-فيفيد (TSA-vivid)™ الفلوروفور 570 | ACD (Bio-Techne) | 323272 | الآن ClariTSA™ فلوروفور 570 |
| أجار التريبتيكاسين الصويا-فيفيد (TSA-vivid)™ فلوروفور 650 | ACD (Bio-Techne) | 323273 | الآن ClariTSA™ فلوروفور 650 |
| الأجهزة/البرمجيات | |||
| المسح الليزري بجهاز Fluoview FV40 مجهر | جليّ | fv400 | ليزر الإثارة: 405/48/561/640/730 نانومتر. الطول الموجي المكتشف (الشكل 3): 430-470، 50-540، 570-620، 650-710، 750-850 نانومتر. الطول الموجي المكتشف (الشكل 4) 430-470، 50-531، 570-620 نانومتر. |
| Graphpad Prism 10 | Graphpad | v10.6.1 | |
| كتلة تسخين | منحة | QBT1 | |
| فرن التهجين Hybrigene | Techne (Bibby Scientific) | FHB4DD | |
| نظام المجهر فائق الدقة Ixplore IX83 SpinSR | Olympus | ixplore-ix83-spinsr | ليزر الإثارة: 405/48/561/640 نانومتر. مرشحات الانبعاث: 47/60، 525/50، 617/73، 685/40. |
| Zeiss Arivis Pro | Carl Zeiss Microscopy GmbH | الإصدار 4.5 (المعروف سابقاً باسم Arivis Vision 4D) | |
| محول Zeiss Arivis SIS | Carl Zeiss Microscopy GmbH | إصدار 4.3.0 |
المراجع
- Bruter AV, Varlamova EA, Okulova YD, Tatarskiy VV, Silaeva YY, Filatov MA. Genetically modified mice as a tool for the study of human diseases. Mol Biol Rep. 2024;51(1):135.
- Rashbrook VS, Brash JT, Ruhrberg C. Cre toxicity in mouse models of cardiovascular physiology and disease. Nat Cardiovasc Res. 2022;1:806–16.
- Breschi A, Gingeras TR, Guigo R. Comparative transcriptomics in human and mouse. Nat Rev Genet. 2017;18(7):425–40.
- Mole MA, Weberling A, Zernicka-Goetz M. Comparative analysis of human and mouse development: From zygote to pre-gastrulation. Curr Top Dev Biol. 2020;136:113–38.
- Krishnan A, Samtani R, Dhanantwari P, Lee E, Yamada S, Shiota K, et al. A detailed comparison of mouse and human cardiac development. Pediatr Res. 2014;76(6):500–7.
- Anderson RH, Bamforth SD. Morphogenesis of the Mammalian Aortic Arch Arteries. Front Cell Dev Biol. 2022;10:892900.
- Wessels A, Sedmera D. Developmental anatomy of the heart: a tale of mice and man. Physiol Genomics. 2003;15(3):165–76.
- Gall JG, Pardue ML. Formation and detection of RNA-DNA hybrid molecules in cytological preparations. Proc Natl Acad Sci U S A. 1969;63(2):378–83.
- John HA, Birnstiel ML, Jones KW. RNA-DNA hybrids at the cytological level. Nature. 1969;223(5206):582–7.
- Buongiorno-Nardelli M, Amaldi F. Autoradiographic detection of molecular hybrids between RNA and DNA in tissue sections. Nature. 1970;225(5236):946–8.
- Dakou E, Vanbekbergen N, Corradi S, Kemp CR, Willems E, Leyns L. Whole-mount in situ hybridization (WISH) optimized for gene expression analysis in mouse embryos and embryoid bodies. Methods Mol Biol. 2014;1211:27–40.
- Anderson R. Multiplex fluorescence in situ hybridization (M-FISH). Methods Mol Biol. 2010;659:83–97.
- Kearney L. Multiplex-FISH (M-FISH): technique, developments and applications. Cytogenet Genome Res. 2006;114(3-4):189–98.
- Burnett R, Guichard Y, Barale E. Immunohistochemistry for light microscopy in safety evaluation of therapeutic agents: an overview. Toxicology. 1997;119(1):83–93.
- Coons AH, Creech HJ, Jones RN. Immunological properties of an antibody containing a fluorescent group. P Soc Exp Biol Med. 1941;47(2):200–2.
- Bardot E, Tzavaras N, Benson DL, Dubois NC. Quantitative Whole-mount Immunofluorescence Analysis of Cardiac Progenitor Populations in Mouse Embryos. J Vis Exp. 2017(128).
- Wang F, Flanagan J, Su N, Wang LC, Bui S, Nielson A, et al. RNAscope: a novel in situ RNA analysis platform for formalin-fixed, paraffin-embedded tissues. J Mol Diagn. 2012;14(1):22–9.
- Erben L, Buonanno A. Detection and Quantification of Multiple RNA Sequences Using Emerging Ultrasensitive Fluorescent In Situ Hybridization Techniques. Curr Protoc Neurosci. 2019;87(1):e63.
- De Bono C, Lescroart F, Zaffran S. How to Study Gene Expression and Gain of Function of Hoxb1 in Mouse Heart Development. Methods Mol Biol. 2025;2889:121–37.
- Zhao R, Moore EL, Gogol MM, Unruh JR, Yu Z, Scott AR, et al. Identification and characterization of intermediate states in mammalian neural crest cell epithelial to mesenchymal transition and delamination. Elife. 2024;13.
- Guijarro C, Kelly RG. On the involvement of the second heart field in congenital heart defects. C R Biol. 2024;347:9–18.
- Bradshaw L, Chaudhry B, Hildreth V, Webb S, Henderson DJ. Dual role for neural crest cells during outflow tract septation in the neural crest-deficient mutant Splotch(2H). J Anat. 2009;214(2):245–57.
- Zawada D, Kornherr J, Meier AB, Santamaria G, Dorn T, Nowak-Imialek M, et al. Retinoic acid signaling modulation guides in vitro specification of human heart field-specific progenitor pools. Nat Commun. 2023;14(1):1722.
- Rabadan MA, Herrera A, Fanlo L, Usieto S, Carmona-Fontaine C, Barriga EH, et al. Delamination of neural crest cells requires transient and reversible Wnt inhibition mediated by Dact1/2. Development. 2016;143(12):2194–205.
- Bhattacharya D, Rothstein M, Azambuja AP, Simoes-Costa M. Control of neural crest multipotency by Wnt signaling and the Lin28/let-7 axis. Elife. 2018;7.
- Kishimoto K, Furukawa KT, Luz-Madrigal A, Yamaoka A, Matsuoka C, Habu M, et al. Bidirectional Wnt signaling between endoderm and mesoderm confers tracheal identity in mouse and human cells. Nat Commun. 2020;11(1):4159.
- De Bono C, Liu Y, Ferrena A, Valentine A, Zheng D, Morrow BE. Single-cell transcriptomics uncovers a non-autonomous Tbx1-dependent genetic program controlling cardiac neural crest cell development. Nat Commun. 2023;14(1):1551.
- Hazra R, Spector DL. Simultaneous visualization of RNA transcripts and proteins in whole-mount mouse preimplantation embryos using single-molecule fluorescence in situ hybridization and immunofluorescence microscopy. Front Cell Dev Biol. 2022;10:986261.
- Kann AP, Krauss RS. Multiplexed RNAscope and immunofluorescence on whole-mount skeletal myofibers and their associated stem cells. Development. 2019;146(20).
إعادة الطباعة والأذونات
الوسوم
تم نشر هذه المقالة
الفيديو قريباً