يقدم هذا العمل بروتوكولاً للحصول على أجنة مستنسخة من نوع مهدد بالانقراض من الغزلان باستخدام بويضات منزوعة النواة من الماشية. نصف هنا المنهجية التفصيلية لنقل نواة خلية جسدية بين الأنواع واستخدام بويضات خالية من المنطقة الشفافة كأشباه خلايا (cytoplasts). بالإضافة إلى ذلك، تتم مناقشة النتائج التي تم الحصول عليها بالتفصيل.
مقالة منهجية
نقل نوى الخلايا الجسدية بين الأنواع باستخدام بويضات خالية من المنطقة الشفافة لبقر (Bos taurus) وأرومات ليفية لغزال (Mazama americana)
في هذه المقالة
ملخص
الملخص
تتيح التقنيات الحيوية التكاثرية المستخدمة في الحيوانات إمكانية زيادة مجموعات الأنواع ذات القيمة الوراثية العالية. وعلاوة على ذلك، تساعد هذه التقنيات في صون المادة الوراثية وحفظها ونشرها من الأفراد الذين يتمتعون بخصائص فائقة. وقد أدى الإنقاذ الوراثي لأفراد مختارين إلى إجراء دراسات عديدة على الأنواع المستأنسة تهدف إلى تعميم النتائج على مجموعات حيوانية أخرى أو أفراد محددين. وأحد هذه النهج يتمثل في استخدام نقل نواة الخلية الجسمية (SCNT)، أو الاستنساخ، والذي يُستخدم لإنتاج أجنة ذات مادة وراثية مطابقة لمادة عينة موجودة. ومن بين القيود التي تفرضها هذه التقنية محدودية توفر البويضات من الحيوانات البرية. وبناءً على ذلك، ظهر نقل نواة الخلية الجسمية بين الأنواع (iSCNT) كبديل، حيث تُستخدم خلية جسمية (karyoplast) من النوع المراد استنساخه كمتبرع بالنواة، ثم تُزرع في بويضة منزوعة النواة (cytoplast) تم الحصول عليها من نوع ينتمي إلى رتبة أو تصنيف مختلف. ويجعل هذا النهج من الممكن الحصول على أجنة مستنسخة قابلة للحياة. وفي البرازيل، هناك تسعة أنواع من الغزلان، والعديد منها مهدد بالانقراض بسبب الصيد الجائر وفقدان الموائل وأسباب أخرى. ويُعد الغزال الأحمر الصغير (Mazama americana) أحد الأنواع التي تعاني من هذه الظروف. لذا، يقدم هذا العمل منهجية للحصول على أجنة مستنسخة من الغزال الأحمر الصغير باستخدام تقنية iSCNT، وذلك من أجل إنشاء بنك للأجنة لنقلها لاحقاً إلى إناث مستقبلة، وبالتالي المساعدة في ضمان بقاء هذا النوع.
المقدمة
تضم عائلة الأيليات (Cervidae) حالياً 55 نوعاً من الثدييات ذات الحوافر التي تمتلك قروناً حقيقية؛ وهي تراكيب عظمية تظهر على الجزء العلوي من جماجم الذكور، باستثناء الرنة (Rangifer tarandus) التي يمتلك فيها كلا الجنسين هذه القرون1، وغزال الماء الصيني (Hydropotes inermis) الذي لا يمتلك فيها أي من الجنسين هذه القرون2. تنتمي الأيليات إلى رتبة Cetartiodactyla، التي تشمل أيضاً عائلات الظباء الشوكية، والبقريات، والخنازير، والتاياسوديات، والجمال، والتانغ، والزرافات، وفرس النهر. وبشكل عام، تُعد الأيليات من المجترات العاشبة التي تستوطن مجموعة متنوعة من الموائل في جميع أنحاء العالم، باستثناء القارة القطبية الجنوبية3.
يُعترف حالياً بتسعة أنواع تنتمي إلى فصيلة الأيائل (Cervidae) في البرازيل، وهي: Odocoileus virginianus (الأيل أبيض الذيل)، وBlastocerus dichotomus (أيل المستنقعات)، وOzotoceros bezoarticus (أيل البامبا)، وMazama americana، وMazama rufa، وMazama jucunda, Mazama nana, Subulo gouazoubira، وPassalites nemorivagus4.
يعكس هذا التصنيف الدراسات الجزيئية الحديثة التي أظهرت أن جنس Mazama متعدد الأصل5، مما أدى إلى الاعتراف بجنسي Subulo6 وPassalites7 كأجناس منفصلة وصالحة. وتتعرض العديد من هذه العلويات النيوتيروبيكية لتهديدات متزايدة بسبب الضغوط البشرية، بما في ذلك فقدان الموائل، وتجزئة المناظر الطبيعية، وما يتبع ذلك من انخفاض في التنوع الجيني المرتبط بعزل المجموعات السكانية8.
على مدى المائة عام الماضية، تم تطبيق تقنيات التكاثر المساعدة بنجاح في البداية على الثدييات المختبرية، ويجري نقلها تدريجياً إلى الأنواع البرية ذات الأولوية العالية في الحفظ9. ونتيجة لذلك، تطورت الغالبية العظمى من التكنولوجيات الحيوية التكاثرية باستخدام نموذج الثدييات، وبالتالي، حظيت هذه المجموعة بمعظم الاهتمام البحثي. وقد تم تطويع عدة تقنيات تكاثرية بنجاح للثدييات، بما في ذلك التلقيح الاصطناعي، ونقل الأجنة، والإخصاب في المختبر، وتحديد جنس الأمشاج والأجنة، والحفظ بالتجميد للموارد الوراثية10. ومع ذلك، فقد برزت تقنية واحدة على وجه الخصوص، وهي نقل نواة الخلية الجسدية (SCNT)، عن غيرها نظراً لنتائجها وتأثيرها المحتمل عند استخدامها في الأنواع المهددة بالانقراض11.
من بين التقنيات الحيوية التناسلية المتاحة، يتيح الاستنساخ إنتاج أفراد متطابقين وراثياً مع الحيوان المانح. ويُعد نقل نوى الخلايا الجسدية (SCNT) الاستراتيجية الرئيسية المستخدمة في الاستنساخ، حيث يتم إدخال نواة خلية جسدية في بويضة منزوعة النواة. ومع ذلك، فإن تطبيق هذه التقنية في سياق الأنواع البرية غالباً ما يكون محدوداً بسبب ندرة البويضات المانحة والصعوبات التقنية المرتبطة باستعادة البويضات12. وقد أدت هذه القيود إلى تطوير نقل نوى الخلايا الجسدية بين الأنواع (iSCNT) كنهج تكميلي في برامج الحفاظ على الأنواع، حيث تُستخدم بويضات من حيوانات مستأنسة كبلاستيدات خلوية مستقبلة لنوى مشتقة من أنواع مهددة بالانقراض (الشكل 1). وقد تم إثبات جدوى هذا النهج من خلال الإنتاج الناجح لنسل حي من عدة أنواع برية باستخدام تقنية iSCNT13,14,15.
لقد اقتُرحت استراتيجيات مختلفة لإنتاج الأجنة المستنسخة، وذلك بناءً على كيفية التعامل مع البويضات والخلايا المانحة. في النهج التقليدي، يتم نزع النواة من البويضات التي تمتلك منطقة شفافة (zona pellucida) سليمة، وبعد ذلك يتم إدخال الخلية المانحة في الحيز حول البويضة ودمجها عن طريق الاندماج الكهربائي16. وثمة إمكانية أخرى تتمثل في الحقن المباشر للنواة الجسدية في بويضة محاطة بالمنطقة الشفافة باستخدام تقنيات المناولة الدقيقة مثل الحقن المجهري17. وفي المقابل، تعمل الأنظمة الخالية من المنطقة الشفافة (ZP-free) على تبسيط إجراءات الاستنساخ من خلال تجنب عدة خطوات من المناولة الدقيقة، حيث يمكن إجراء عملية نزع النواة باستخدام ماصة غير مدببة دون الحاجة إلى معدات معقدة18. في هذا الاختبار، نقترح استخدام البويضات الخالية من المنطقة الشفافة كبلازمات خلوية (cytoplasts) أثناء عملية نقل نواة خلية جسدية واحدة (iSCNT) للحصول على أجنة مستنسخة باستخدام بلازما خلوية بقرية ونواة خلية (karyoplast) من الغزال.
البروتوكول
تم استعادة أنثى بالغة من غزال البروكيت الأحمر من قبل السلطات البيئية في غواراميرانغا، سيارا، البرازيل (4°13'53.0'' S, 38°56'42.6'' W). استُلم الحيوان ميتاً في مختبر الحفاظ على الأيائل النيوتيروبيكية (LACCERNE)، جامعة ولاية سيارا (UECE)، فورتاليزا، البرازيل. وأشارت نتائج التشريح إلى أن الوفاة نتجت عن إصابات رضحيّة متعددة تسبب بها مقذوف ناري دخل من المنطقة البطنية الظهرية الجانبية اليسرى. وقد صُرِح باستخدام هذه العينة من قبل لجنة أخلاقيات التجارب على الحيوان في جامعة ولاية سيارا (CEUA-UECE، بروتوكول رقم 450620/2022) والمعهد البرازيلي للبيئة والموارد الطبيعية المتجددة (IBAMA، بروتوكول رقم 02027.014734/99-34). بالإضافة إلى ذلك، تمت الموافقة على استخدام مبايض البقر من قبل CEUA/UECE (بروتوكول رقم 31032.004671/2024-81). وترد تفاصيل جميع الكواشف والمعدات المستخدمة في جدول المواد. البيانات الداعمة لهذه الدراسة متاحة عبر Zenodo تحت رقم DOI 10.5281/zenodo.22129414.
1. المحاليل وأوساط الزراعة
ملاحظة: قم بإجراء جميع عمليات الترشيح باستخدام مرشح معقم بمسامية 0.22 µm، واحفظ الراشح في درجة حرارة 4 °C لمدة تصل إلى أسبوع واحد. احفظ المحلول المخزون في درجة حرارة -20 °C.
- وسط النقل: أضف 8.1 g من NaCl و0.045 g من pentabiotic وأكمل الحجم إلى 900 mL باستخدام الماء المقطر.
- المحلول الملحي المنظم بالفوسفات (PBS): أضف 0.4 g من NaCl، و0.01 g من KCl، و0.077 g من NaH2PO4، و0.01 g من KH2PO4، وأكمل الحجم إلى 50 mL باستخدام الماء عالي النقاء.
- وسط زراعة الخلايا: وسط Dulbecco's Modified Eagle Medium (DMEM) مضاف إليه 10% (v/v) من مصل جنين البقر (FBS) و1.0% (v/v) من محلول البنسلين والستربتومايسين والأمفوتيريسين ب (ATB).
- محلول الحفظ بالتجميد للأرومات الليفية: DMEM مضاف إليه 10% (v/v) من FBS و10% (v/v) من dimethyl sulfoxide (DMSO)، و2.0% (v/v) من محلول ATB.
- Trypsin-EDTA (0.25%).
- وسط المناولة: وسط Tyrode المنظم بـ HEPES والذي يحتوي على الألبومين واللاكتات والبيروفات (H-TALP). يُستخدم هذا الوسط لجميع الإجراءات التي تُجرى خارج الحاضنة. لتحضير 1 L، أضف 6.763 g من NaCl، و0.239 g من KCl، و0.294 g من CaCl2·2H2O، و0.048 g من MgCl2، و0.168 g من NaHCO3 و3.575 g من HEPES، إلى 981.86 mL من الماء المعقم المختبر للأجنة. رُج الخليط وأضف 10 mL من مضاد حيوي ومضاد للفطريات، و1 mL من phenol red، و1.44 mL من sodium lactate، و1 mL من محلول مخزون sodium pyruvate بتركيز 100 mM، و3 g من bovine serum albumin (BSA). اضبط الاسمولالية لتكون 280 mOsm والـ pH في نطاق 7.2 إلى 7.4. قسّم الوسط إلى حصص حجم كل منها 50 mL وخزنها عند 4 °C لمدة شهر واحد.
- وسط الإنضاج في المختبر: وسط Medium 199 (TCM-199) مضاف إليه 10% (v/v) من FBS، و10 ng/mL من عامل نمو البشرة (EGF)، و1 mM من sodium pyruvate، و100 µM من cysteamine، و10 µg/mL من الهرمون المنبه للحويصلة (FSH)، و1 µg/mL من estradiol، و1% (v/v) من ATB. اضبط الـ pH ليكون 7.2–7.4.
- محلول Hyaluronidase (التركيز النهائي: 1 mg/mL): أذب 10 mg من hyaluronidase في 10 mL من H-TALP. حضر حصصاً بحجم 200 µL في أنابيب 1.5-mL، لتكون جاهزة للاستخدام.
- محلول Pronase (التركيز النهائي: 1.5 mg/mL): أذب 15 mg من pronase في 10 mL من H-TALP. حضر حصصاً بحجم 200 µL في أنابيب 1.5-mL، لتكون جاهزة للاستخدام.
- Demecolcine (التركيز النهائي: 0.4 µg/mL): أذب 5 mg من demecolcine (DMC) في 125 µL من DMSO وحضر حصصاً بحجم 5 µL (محلول مخزون). جمد الحصص حتى وقت الاستخدام. خففها بخلط 2 µL من المحلول المخزون مع 1998 µL من TCM للحصول على محلول التشغيل. قبل الاستخدام، أضف 5 µL من محلول التشغيل إلى 495 µL من سائل قناة البيض الاصطناعي (SOF).
- Hoechst (التركيز النهائي: 10 µg/mL): أذب 1 mg/mL من Hoechst 33342 في H-TALP. حضر حصصاً بحجم 5 µL وتخفيفات بنسبة 1:100 في وسط زراعة SOF.
تنبيه: إن Hoechst 33342، المستخدم لتصوير DNA النووي تحت الأشعة فوق البنفسجية، هو عامل إقحام ومطفر قوي. يجب التعامل معه باستخدام معدات الوقاية الشخصية المناسبة. - Phytohemagglutinin (التركيز النهائي: 1 mg/mL): أذب 5 mg من phytohemagglutinin (PHA) في 500 µL من H-TALP. حضر حصصاً بحجم 10 µL في أنابيب 200 µL. عند الاستخدام، أضف 90 µL من H-TALP.
- أوساط دمج الخلايا: 0.3 M من mannitol، و0.1 mM من MgSO4، و0.05 mM من CaCl2، وHEPES بتركيز 0.5 mM و1 mg/mL من polyvinyl alcohol (PVA) في ماء عالي النقاء. تُستخدم في نفس يوم التحضير.
- Ionomycin (التركيز النهائي: 5 µM): أضف 1 mL من DMSO إلى عبوة ionomycin (بتركيز 1 mg/عبوة). أضف 1.67 mL من TCM-199. جمد حصصاً بحجم 10 µL في أنابيب 1.5 mL عند -20 °C. عند الاستخدام، أضف 990 µL من H-TALP إلى محتويات كل أنبوب 1.5 mL. يحفظ بعيداً عن الضوء.
- 6-Dimethylaminopurine (التركيز النهائي: 2 mM): أذب 10 mg من 6-dimethylaminopurine (6-DMAP). جمد حصصاً بحجم 50 µL في أنابيب 1.5-mL عند -20 °C. عند الاستخدام، أضف 950 µL من SOF إلى محتويات كل أنبوب 1.5 mL.
- وسط زراعة الأجنة: 0.2 mM من L-glutamine، و0.2 mM من sodium pyruvate، و2% من الأحماض الأمينية الأساسية Basal Medium Eagle (BME)، و1% من الأحماض الأمينية غير الأساسية MEM 100×، و1.0% (v/v) من محلول ATB، و2.77 mM من myo-inositol، و2.5% (v/v) من FBS، و10 µL/mL من ITS (مزيج من insulin وhuman transferrin وsodium selenite) و3 g/L من BSA.
2. جمع عينة نسيج المتبرع والتعامل معها
- اغسل واحلق سطح أذن الأنثى المانحة بالصابون والماء؛ ثم قم بتطهير المنطقة باستخدام الكحول (70%).
- استأصل عينة صغيرة من الأذن (1 × 2 cm) باستخدام شفرة المشرط، وضعها في محلول PBS يحتوي على 4% ATB، وانقلها إلى المختبر مع الحفاظ عليها عند درجة حرارة 4 °C.
- قطع عينة الخزعة إلى قطع صغيرة باستخدام شفرة المشرط وضعها في طبق بتري مقاس 35 mm مغطى بالوسط الزرعي. يتم الزرع عند درجة حرارة 38.5 °C تحت رطوبة مشبعة مع 5% CO₂.
- استبدل الوسط الزرعي كل 48 h حتى تصل الخلايا إلى حالة الالتحام، وذلك لمنع التلوث.
- أزل الوسط الزرعي من الطبق الملتحم وأضف 1 mL من trypsin-EDTA بتركيز 0.25% إلى طبق بتري مقاس 35 mm لمدة 2 min.
- لإبطال مفعول التريبسين، أضف 2 mL من وسط زراعة الخلايا. انقل معلق الخلايا إلى أنبوب سعة 15 mL وقم بالطرد المركزي عند 200 x g لمدة 10 min في درجة حرارة الغرفة (≈ 25 °C).
- أزل السائل الطافي وأعد تعليق الكتلة الخلوية في 10 mL من الوسط الزرعي. قم بتمرير زراعة الخلايا الليفية كل 5 days.
- قم بحفظ الخلايا الليفية بالتبريد عن طريق إعادة تعليق الكتلة الخلوية في 1 mL من محلول الحفظ بالتبريد. انقل معلق الخلايا إلى أنابيب حفظ التجميد، وضعها عند -80 °C في حاوية تجميد بمعدل محكوم لمدة 18 h، ثم انقلها إلى خزان نيتروجين سائل (-196 °C) حتى وقت الاستخدام. بعد الحفظ بالتبريد للخلايا الليفية، يمكن إيقاف التعامل مع الخلايا واستئنافه فقط في وقت مزامنة الدورة الخلوية.
- قم بإذابة وزراعة الخلايا الليفية قبل 1-2 weeks من استخدامها في عملية iSCNT.
3. مزامنة الدورة الخلوية
- قم بمزامنة الدورة الخلوية عن طريق الوصول إلى مرحلة التلاقي (confluence) في طور G0/G1.
- قم بإزالة وسط الزرع من الطبق المتلاقي وأضف 1 mL من trypsin-EDTA بتركيز 0.25% إلى طبق بتري مقاس 35 mm لمدة 2 min في حاضنة CO₂ عند درجة حرارة 38.5 °C. أضف 2 mL من وسط الزرع لتعطيل مفعول الـ trypsin.
- انقل معلق الخلايا إلى أنبوب سعة 15 mL وقم بالطرد المركزي عند 200 x g لمدة 10 min.
- قم بإزالة الراشح وأعد تعليق الرواسب الخلوية في 1-3 mL من وسط الزرع الخلوي المخصص لـ iSCNT.
4. جمع البويضات
- اجمع المبيضان البقريان من العجلات أو الأبقار فور الذبح وانقلهما إلى المختبر في وعاء عازل للحرارة (ترمس) يحتوي على وسط نقل، مع الحفاظ على درجة حرارة تتراوح بين 25-30 °C.
- اغسل المبيضان مرتين باستخدام وسط استنبات وضعهما في كؤوس زجاجية داخل حمام مائي عند درجة حرارة 38.5 °C.
- قم بشفط السائل الجريبي من الجريبات التي يتراوح قطرها بين 2-8 mm باستخدام إبرة قياس 18-gauge متصلة بمحقنة سعة 10 mL تحتوي على وسط H-TALP.
- انقل السائل الجريبي المشفوط إلى أنبوب مخروطي سعة 50-mL واتركه لمدة 15 min على الأقل في حمام مائي عند درجة حرارة 38.5 °C.
5. إنضاج البويضات وإزالة الخلايا المحيطة
- بعد مرور 15 min، انقل الراسب بالكامل بعناية باستخدام ماصة باستور بلاستيكية إلى أطباق بتري (100 × 15 mm).
- استخدم مجهراً مجسماً لاختيار معقدات الخلايا الحبيبية والبويضات (COCs) التي تحتوي على ثلاث طبقات مدمجة على الأقل من الخلايا الحبيبية وتتوافق مع الدرجات من I إلى III (الجدول 1)19.
- اغسل معقدات COCs ثلاث مرات بنصف كمية وسط H-TALP، ثم مرتين باستخدام وسط الإنضاج المختبري.
- انقل من 20-25 من معقدات COCs إلى كل قطرة بحجم 100 µL من وسط الإنضاج المختبري المغطى بالزيت المعدني. حضنها عند 38.5 °C في جو يحتوي على 5% CO₂ ورطوبة مشبعة لمدة 20-22 h.
- قم بإزالة الخلايا من تجمعات COC عن طريق سحبها برفق باستخدام الماصة في 200 µL من محلول hyaluronidase لمدة 2 min.
- اغسل البويضات لتخليصها من الخلايا الحبيبية في 2 mL من وسط H-TALP.
- تحت المجهر المجسم، اختر البويضات التي تظهر طرداً للجسم القطبي الأول (الطور الاستوائي الثاني - MII) للمراحل اللاحقة.
6. إزالة المنطقة الشفافة، واستئصال النواة، وإعادة بناء البويضات الخالية من المنطقة الشفافة
- يتم تحضين البويضات في المرحلة MII في قطرة بحجم 100 µL من محلول pronase عند درجة حرارة 38.5 °C لمدة تتراوح من 1-2 دقيقة. وتتم المراقبة تحت مجهر ستيريو حتى تبدأ المنطقة الشفافة (zona pellucida) في الترقق.
- تُسترجع البويضات فوراً وتوضع في وسط استزراع مدعم بـ 20% FBS لتعطيل مفعول pronase.
- تُحضن البويضات الخالية من المنطقة الشفافة في وسط SOF يحتوي على 0.4 µg/mL من demecolcine لمدة 20 دقيقة لتحفيز ظهور بروز سيتوبلازمي يحتوي على DNA، يليه تحضين ثانٍ لمدة 20 دقيقة في الوسط نفسه مدعماً بـ 10 µg/mL من Hoechst.
- تُنقل البويضات الخالية من المنطقة الشفافة إلى قطرات من H-TALP ويتم إجراء عملية إزالة النواة باستخدام أجهزة التحكم الدقيقة (micromanipulators) المتصلة بمجهر مقلوب.
- توضع البويضة بجانب ماصة التثبيت (holding pipette).
- تُدوّر البويضة حتى يصبح البروز في وضع الساعة الثالثة، ثم يُشفط البروز مع 5-10% من السيتوبلازم باستخدام ماصة حقن ذات طرف غير مدبب بقطر 25 µm.
- يتم التأكد من نجاح عملية إزالة النواة عن طريق فحص السيتوبلازم المشفوط تحت الأشعة فوق البنفسجية (الشكل 2).
تنبيه: يؤدي تعريض البويضات لصبغات DNA والأشعة فوق البنفسجية إلى تلف المادة الوراثية وتحفيز الإجهاد التأكسدي. يجب تقليل وقت التعريض إلى الحد الأدنى.
7. دمج الخلايا
- قم بتجميع غرفة الدمج تحت مجهر ستيريو واملأها بـ 2 mL من وسط الدمج عند pH 7.
- في طبق بتري بقطر 60 mm، جهّز خمس قطرات بحجم 100 µL وقطرة واحدة بحجم 30 µL من H-TALP، وأضف 50 µL من PHA.
- أضف 5 µL من الخلايا الليفية إلى قطرة H-TALP بحجم 30 µL، واختَر الخلايا المتجانسة والمنكسرة للضوء، وانقلها إلى قطرة H-TALP بحجم 100 µL.
- انقل البويضات المنزوعة النواة إلى قطرة H-TALP بحجم 100 µL.
- عرّض البويضة لقطرة PHA لمدة 4 s، وضعها فوق خلية، وتأكد من التصاقهما. ثم انقل المعقد إلى قطرة TALP-H خالية من أي محتويات.
- بعد التصاق البويضة والخلية، انقلهما إلى طبق يحتوي على 2 mL من وسط الدمج للسماح لهما بالاستقرار. ثم، ضع المعقد في غرفة الدمج بين الأقطاب الكهربائية، مع وضع الخلية عند موضع الساعة 6 أو 12.
تنبيه: تحتوي محاليل التنشيط المستخدمة أثناء الدمج الكهربائي على ionomycin، الذي يعطل التوازن الداخلي للكالسيوم الخلوي. تشكل المجالات الكهربائية ذات الجهد العالي خطر التعرض لصدمة كهربائية أو حدوث قوس كهربائي إذا كانت المعدات مبللة أو تم التعامل معها بشكل خاطئ. - أجرِ عملية الدمج باستخدام غرفة دمج مجهرية بفجوة قطب تبلغ 0.2 mm. وباستخدام جهاز التثقيب الكهربائي، طبّق سلسلة نبضات واحدة تتكون من نبضتين أحاديتي الاتجاه من التيار المستمر بجهد 0.72 kV/cm، بحيث تستمر كل نبضة لمدة 30 µs وبفاصل 0.1 s بين النبضات.
- بعد تطبيق النبضة، انقل كل زوج من (البويضة-الخلية) بشكل فردي إلى قطرات مجهرية بحجم 5 µL من SOF مضاف إليها 2.5% FBS، وازرعها عند 38.5 °C في جو يحتوي على 5% CO₂.
- قيّم عملية الدمج بشكل فردي بعد 30 min تحت مجهر ستيريو.
- أخضع أي تراكيب غير مدمجة لجولة ثانية من الدمج.
- اعتبر المعقدات المدمجة كأجنة مُعاد تكوينها بدون غشاء شفاف (zona pellucida)، واحضنها لمدة 2 h حتى التنشيط (وقت إعادة البرمجة).
8. تنشيط البويضة واستزراع الأجنة
- قم بتحضين التراكيب المعاد تشكيلها في قطرات بحجم 100 µL من وسط H-TALP الذي يحتوي على 5 µM من ionomycin لمدة 4 min.
- اغسل التراكيب المعاد تشكيلها باستخدام أربع قطرات بحجم 100 µL من وسط H-TALP.
- قم بتحضين التراكيب المعاد تشكيلها في قطرات بحجم 100 µL من وسط SOF الذي يحتوي على 2 mM من 6-DMAP لمدة 3 h.
- اغسل التراكيب المعاد تشكيلها باستخدام أربع قطرات بحجم 100 µL من وسط SOF.
- قم بتجهيز أطباق ذات آبار دقيقة باستخدام أنبوب شعري زجاجي مسخن يُضغط برفق على قاع طبق بتري مقاس 35 × 10 mm. قم بتجهيز ما بين 20 و25 بئراً دقيقاً، بحيث يكون قطر كل بئر 500 µm وعمقه 250 µm20.
- ضع الأجنة المعاد تشكيلها بشكل فردي في آبار الصفائح الدقيقة المعدلة، وغطها بـ 100 µL من وسط SOF، ثم غطها أخيراً بـ 3 mL من الزيت المعدني. ضع الصفائح الدقيقة في حاضنة ثلاثية الغازات تحتوي على 5% CO₂ و 5% O₂ و 90% N₂ لمدة 7 days.
النتائج
تم تحليل النتائج باستخدام برنامج R (الإصدار v.4.5.2). وقورنت معدلات الانقسام والحويصلة الأريمية بين الأزواج (غزال/ماشية مقابل ماشية/ماشية) باستخدام اختبار فيشر الدقيق. تم إجراء عشر مكررات: أربع مكررات لزوج الغزال/الماشية وست مكررات لزوج الماشية/الماشية. بالإضافة إلى ذلك، تم تحديد مستوى الدلالة بـ 5% لجميع التحليلات.
خلال الاختبار، استُخدمت 472 بويضة بقرية تم الحصول عليها من مسلخ محلي كـمستقبلات لسيتوبلاست. ومع ذلك، بعد الإنضاج في المختبر والاندماج الكهربائي اللاحق، فشلت 73 بنية في الاندماج واستُبعدت من الخطوات التالية، مما أدى إلى الحصول على 399 بنية مندمجة بنجاح من (كاريوبلاست/سيتوبلاست). ومن هذا الإجمالي، استُخدمت الأزواج التالية (كاريوبلاست/سيتوبلاست): أربع مكررات من الغزال/الماشية (n = 175) وست مكررات من الماشية/الماشية (n = 224) (الجدول 2).
لتقييم تأثير iSCNT، تم استزراع الأجنة المعاد بناؤها والخالية من المنطقة الشفافة في آبار دقيقة حتى اليوم 7. تظهر الصور المجهرية التمثيلية للتوتة والقسيمة blastocyst بدون المنطقة الشفافة في الشكل 3.
الجدول 2 يوضح معدلات الانقسام وتكون البلاستوسيت التي تم الحصول عليها في هذه التجربة. لم يظهر معدل الانقسام أي فروق ذات دلالة إحصائية (P = 0.74) بين المجموعات (أزواج الغزال/الماشية والماشية/الماشية). من ناحية أخرى، فيما يتعلق بمعدل تكوين البلاستوسيت، لوحظ وجود فرق إحصائي (P=0.02)، حيث كانت النسبة أعلى في مجموعة الاستنساخ داخل النوع الواحد. ومع ذلك، من المهم تسليط الضوء على محدودية القوة الإحصائية لهذا النوع من التجارب، والتي عادة ما يكون فيها عدد المستنسخات بين الأنواع صغيرة.
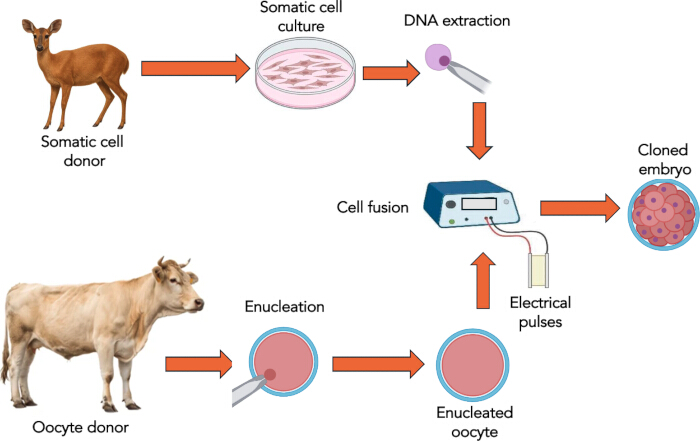
الشكل 1المراحل التخطيطية لنقل نواة الخلية الجسدية بين الأنواع. تُستخدم الأبقار كمانحات للسيتوبلاست، بينما تُستخدم الغزلان كمانحات للكاريوبلاست. وبعد الحصول على الجنين المستنسخ، يمكن نقله إلى إناث مستقبلة أو حفظه بالتجميد لنقله في المستقبل. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
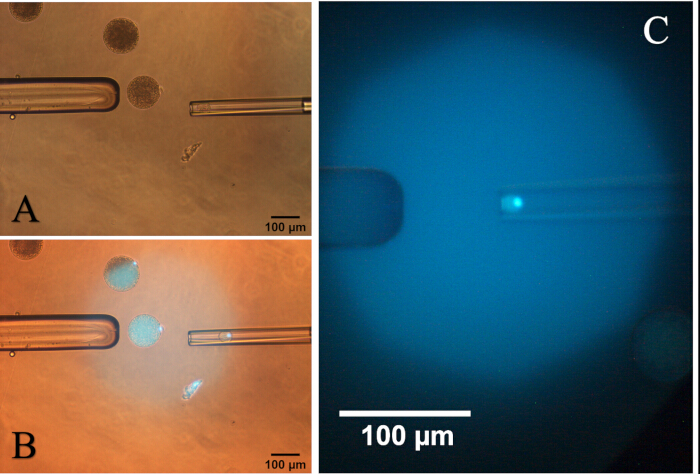
الشكل 2: صورة مجهرية لبويضة منشطة مع بروز سيتوبلازمي. (A) تدوير البويضة لوضع البروز عند موضع الساعة الثالثة. (B) سحب البروز مع 5-10% من السيتوبلازم تحت التعرض للأشعة فوق البنفسجية. (C) السيتوبلازم وبروزه داخل ماصة السحب تحت الأشعة فوق البنفسجية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
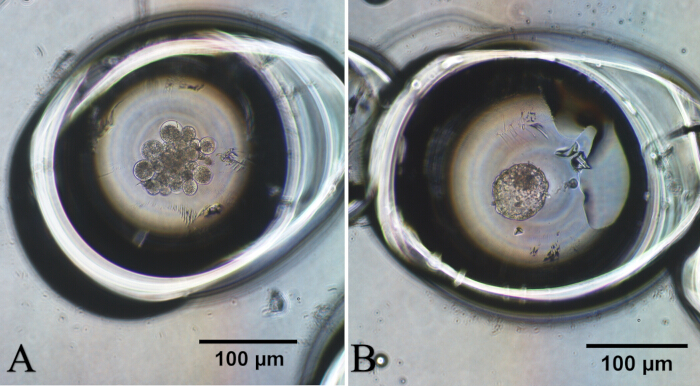
الشكل 3: صور مجهرية لأجنة الغزلان الناتجة عن نقل نواة خلية جسدية بين الأنواع. (أ) جنين مستنسخ في مرحلة التوتة. (ب) جنين مستنسخ في مرحلة الكيسة الأرومية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| درجة | عدد طبقات الخلايا الركامية | تمدد الخلايا المحيطة بالبويضة |
| I | > 3 | غطاء ركامي كامل مع وجود عدة طبقات خلوية متراصة وأخرى مفككة قليلاً |
| ٢ | 2 - 3 | توسع طفيف في طبقات الخلايا الخارجية |
| ٣ | 1 | تغطية جزئية بالخلايا الركامية وطبقات خلوية مفككة |
| الحقن الوريدي | 0 | غياب السحب الركامية |
الجدول 1: تصنيف البويضات البقرية التي سيتم استئصال نواتها لاحقاً واستخدامها كسيتوبلاست أثناء نقل نواة خلية جسدية بين الأنواع (مقتبس من Aguila et al.)19.
| المجموعات (كاريبلاست/سيتوبلاست) | عدد المكررات | عدد الأجنة المعاد بناؤها | عدد المقطوعات (%) | عدد الكيسات الأريمية (%) |
| الغزلان/الماشية | 4 | 175 | 122 (69.7)a | 8 (4.6)أ |
| الماشية/الماشية | 6 | 224 | 160 (71.4)أ | 24 (10.7)b |
| تشير الأحرف المختلفة في العمود نفسه إلى وجود فرق إحصائي. | ||||
| معدل الانقسام: P = 0.74 | ||||
| معدل تكوين الكيسة الأرومية: P = 0.02 | ||||
الجدول 2: التطوير المختبري للأجنة المستنسخة لغزال البروكت الأحمر باستخدام سيتوبلاست بقري. تم إجراء عشر مكررات: أربعة من زوج غزال/ماشية وستة من زوج ماشية/ماشية. حُسبت معدلات الانقسام والبلاستوسيت باستخدام عدد الأجنة المعاد تركيبها كمقام.
المناقشة
لقد تم توثيق أن جينوم الأنواع المهددة بالانقراض يمكن إعادة برمجه باستخدام بويضات من حيوانات المزرعة، وخاصة الأبقار والخنازير، والتي تعد أكبر مصدر للسيتوبلاست21. وكان أحد أكبر التطورات التي تحققت في تقنية iSCNT هو استنساخ الوعل البيريني (Capra pyrenaica pyrenaica)، وهو نويع كان قد اختفى بعد وفاة آخر فرد معروف منه. تم الحصول على الأجنة المعاد بناؤها عن طريق دمج الخلايا الظهارية للوعل مع بويضات الماعز (Capra hircus). وقد تمكن المؤلفون من الحصول على ولادة أنثى، دون وجود تشوهات مورفولوجية خارجية. ومع ذلك، عانت النسل من فشل تنفسي حاد وماتت بعد دقائق قليلة من الولادة22.
يُعد الماموث الصوفي (Mammuthus primigenius) أحد أقوى المرشحين لعملية "إعادة الإحياء". ولكي يكون الاستنساخ ممكناً، يُعد توفر أنسجة حيوية تحتوي على نويات يمكن تحديدها أمراً أساسياً، وهو أمر صعب بالنسبة لنوع انقرض منذ حوالي 10,000 سنة. ومع ذلك، فإن أجسام الماموث التي عُثر عليها في طبقة الأرض المتجمدة تستوفي الحد الأدنى من متطلبات تقنية iSCNT23. ورغم ذلك، ربما تكون الأنواع المهددة بالانقراض هي المرشحين الأكثر ملاءمة للاستفادة من استخدام هذه التقنية.
أظهر معدل التجزئة الملاحظ في دراستنا أن التنشيط والانقسام الجنيني الأول لم يتأثرا بالتركيبة بين الأنواع للنواة والسيتوبلازم. وخلال مرحلة إعادة البناء، أظهرت مناولة ودمج البنى (karyoplast/cytoplast) نفس السهولة التقنية في كلتا المجموعتين، مما يشير إلى توافق بنيوي بين الأنواع. وفيما يتعلق بمعدل تكوين الكيسة الأرومية، تشير النتائج إلى أنه على الرغم من أن إعادة البناء والتنشيط المبكر للجنين الناتج عن iSCNT لا يمثلان عاملاً مقيداً، إلا أن هناك عدم توافق نووي-سيتوبلازمي يظهر في مراحل التطور اللاحقة، ويرجح أن يكون ذلك مرتبطاً بإعادة برمجة فوق جينية غير مكتملة أو بالانتقال من المرحلة الأمومية إلى الزيجوتية، مما يؤثر على قدرة الجنين الهجين على الوصول إلى مرحلة الكيسة الأرومية24. وتميل كفاءة iSCNT إلى أن تكون أعلى عندما تكون karyoplasts و cytoplasts مشتقة من أنواع مرتبطة تطورياً، حيث يشير الإنتاج الطبيعي لنسل هجين قابل للحياة إلى درجة من التوافق النووي السيتوبلازمي بين النوعين23. وبناءً على ذلك، فقد ثبت بالفعل أن SCNT بين الأنواع الفرعية ينتج نسلاً سليماً؛ حيث استخدم الباحثون cytoplast من كلبة وfibroblast من ذئب ونقلوا الأجنة إلى 12 أنثى، مما أدى إلى ولادة أحد المواليد25.
يواجه استخدام iSCNT "قيداً جوهرياً في القدرة" فيما يتعلق بكفاءته البيولوجية والتنموية، والتي تنخفض بشكل حاد مع زيادة المسافة التطورية بين نواة المتبرع وبويضة المستقبل. وبينما ينجح هذا الإجراء بين الأنواع ذات الصلة الوثيقة (على سبيل المثال، الماشية المستأنسة والجور)26، فإنه يفشل عادةً في إنتاج نسل قابل للحياة أو خطوط خلوية جنينية مستقرة عند محاولة تجاوز حدود تصنيفية أكثر تباعداً.
تمثل الاستنساخ أداة مهمة لبرامج تربية الحيوانات والحفاظ عليها، حيث يتيح إكثار الأفراد المتفوقين وراثياً، ويدعم إنتاج الحيوانات المعدلة وراثياً، ويساهم في الحفاظ طويل الأمد على الموارد الوراثية القيمة من خلال بنوك الجينات. ومع ذلك، لا يزال اعتماد الاستنساخ في برامج تربية الماشية مقيداً بانخفاض عدد الحيوانات الحية الناتجة مقارنة بعدد الأجنة المنقولة18. وتنقسم النهج الحالية لإنتاج الأجنة المستنسخة عموماً إلى فئتين: الاستنساخ التقليدي والاستنساخ الخالي من المنطقة الشفافة (ZP-free cloning). ففي النهج التقليدي، يلزم استخدام جهاز تلاعب مجهري (micromanipulator) لإزالة نواة البويضة وإدخال الخلية الجسدية المانحة في السيتوبلاست المستقبل26. وبخلاف الاستنساخ التقليدي، يتم تنفيذ طريقة ZP-free بدون تلاعب مجهري27. وكانت النتائج التي تم الحصول عليها في دراستنا مشابهة جداً لتلك التي تم التحقق منها باستخدام تقنية iSCNT، سواء من حيث معدل الانقسام أو إنتاج البلاستوسيت20,21.
أخيراً، وبالنظر إلى الخطوات المختلفة لهذا الإجراء، من المهم تسليط الضوء على النقاط الحرجة وطرق استكشاف الأخطاء وإصلاحها عملياً. فيما يتعلق بإزالة الغشاء الشفاف (ZP)، يوفر الاستنساخ الخالي من الغشاء الشفاف عدة مزايا، بما في ذلك سهولة التشغيل، وفعالية التكلفة، ومعدل ولادة حية مُحسن نسبياً لكل جنين منقول28. إن التأكد من الإزالة الكاملة للنواة (enucleation) دون التسبب في تلف قاتل للسيتوبلاست يحدد ما إذا كان الهيكل المعاد بناؤه يمكنه دعم جنين مستنسخ بنجاح. وعلى الرغم من أن التعرض للأشعة فوق البنفسجية (UV) معروف بآثاره الضارة29، إلا أنه يُستخدم بشكل روتيني في غالبية مختبرات الاستنساخ. وأخيراً، تفتقر زراعة الأجنة الخالية من الغشاء الشفاف إلى القشرة البروتينية السكرية الخارجية الواقية، مما يؤدي إلى مشاكل رئيسية مثل الهشاشة الفيزيائية العالية أثناء المناولة وتفكك الخلايا الأرومية30.
وفي الختام، ينبغي تفسير النتائج التي تم الحصول عليها في دراستنا على أنها أدلة أولية على الجدوى التقنية لبروتوكول iSCNT في مزيج الغزال/الماشية، بدلاً من اعتبارها دليلاً قاطعاً على فعاليتها الإنتاجية. وبناءً على ذلك، هناك حاجة إلى إجراء دراسات إضافية باستخدام عدد أكبر من المكررات لتأكيد هذه النتائج.
الإفصاحات
يصرح المؤلفون بعدم وجود أي تضارب في المصالح.
شكر وتقدير
تم دعم هذا العمل من قبل المؤسسة السيارينسية لدعم التطوير العلمي والتكنولوجي (FUNCAP، فورتاليزا، البرازيل، منحة رقم 11212233/2022) والمعاهد الوطنية للعلوم والتكنولوجيا (INCT/CNPq، منحة رقم 406866/2022-8).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| إبرة سحب (18G) | LABIMPORT | 353601 | إبرة تستخدم لمرة واحدة، ذات قطع قصير |
| 6-ديميثيل أمينوبورين (6-DMAP) | Sigma-Aldrich | D2629 | |
| مضاد حيوي–مضاد للفطريات | Gibco, Thermo Fisher Scientific | 15240062 | |
| ألبومين المصل البقري | Sigma-Aldrich | A9647 | |
| كلوريد الكالسيوم ثنائي الهيدرات (CaCl2·2H2O) | Sigma-Aldrich | C7902 | |
| دورق زراعة خلايا T-25 | Corning | 430639 | |
| جهاز الحقن الدقيق CellTram | Eppendorf | 5196 000.021 | |
| جهاز طرد مركزي | Eppendorf | 5702 | يستخدم لطرد الخلايا مركزياً عند 200 × g لمدة 10 دقائق لترسيب العينات وغسلها قبل إجراءات نقل النواة. |
| أنابيب طرد مركزي (50mL) | Corning | CLS430291 | |
| أنابيب حفظ تجميدية (1.8 mL) | Nunc / Thermo Fisher | 368632 | |
| سيستيامين | Sigma-Aldrich | M9768 | |
| ديميكولسين | Sigma-Aldrich | D1925 | |
| ماء مقطر. | _ | _ | |
| DMSO (تجميد الخلايا) | Sigma-Aldrich | D2650 | واقي من التجمد بنسبة 10% لحفظ خلايا المانح بالتجميد |
| وسط دولبكو المعدل (DMEM) | Gibco / Thermo Fisher | 11995065 | |
| ماصة إزالة النواة (قطر داخلي 20–25 µm) | Narishige | GD-1 | |
| عامل نمو البشرة (EGF) | Sigma-Aldrich | E4127 | |
| أحماض أمينية أساسية BME | Sigma-Aldrich | M5550 | |
| إستراديول | Sigma-Aldrich | E8875 | |
| حاضنة EVE (5% O2, 5% CO2, 90% N2) | WTA medical | REF. 23578 | |
| مصل جنين بقري (FBS) | Bio Nutrientes, Induslab | FEN-500 | |
| FSH (Folltropin-V) | Vetoquinol | Q-7090-124 | |
| أنبوبة شعرية زجاجية مع خيط | Narishige | GD-1 | تستخدم هذه الأنبوبة الشعرية الزجاجية لعمل آبار دقيقة في طبق بتري |
| لوح تسخين | WTA medical | 17656 | |
| هيبس (Hepes) | Sigma-Aldrich | H6147 | |
| Hoechst 33342 (صبغة DNA) | Sigma-Aldrich | B2261 | |
| ماصة تثبيت (قطر خارجي 120 μm) | Narishige | GD-1 | |
| هيالورونيداز | Sigma-Aldrich | H4272 | |
| مجهر مقلوب ECLIPSE | Nikon | TE2000-U | |
| أيونوميسين (ناقل أيونات الكالسيوم A23187) | Sigma-Aldrich | I0634 | |
| ITS | Sigma-Aldrich | I2771 | |
| KCl | Sigma-Aldrich | P5405 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| خزانة تدفق صفائحي Isocide | Esco | 2120765 | خزانة تدفق صفائحي توفر بيئة عمل معقمة لإجراءات زراعة الأجنة والخلايا. |
| L-جلوتامين | Sigma-Aldrich | G8540 | |
| وعاء تخزين النيتروجين السائل | Nitroagro | Varies | |
| كبريتات المغنيسيوم (MgSO4) | Sigma-Aldrich | M2643 | |
| وسط دمج المانيتول (0.3M) | Sigma-Aldrich | M9546 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| جهاز تشكيل دقيق MF-900 | Narishige | MF-900 | |
| نظام تلاعب دقيق | Narishige | MM-89 / TransferMan 4r | |
| جهاز سحب الماصات الدقيقة | Narishige | Narishige PC-100 | |
| ماصات دقيقة (10 µL, 20 µL, 100 µL, 200 µL, 1000 µL) | Eppendorf | Research Plus Series | |
| غرفة دمج دقيق | Eppendorf | 12816532 | ملحق متخصص بفجوة 0.2 مم مصمم لتطبيقات التثقيب الكهربائي |
| زيت معدني (مختبر للأجنة) | Sigma-Aldrich | M8410 | |
| جهاز Multiporator | Eppendorf | 4308 000.015 | |
| ميو-إينوزيتول | Sigma-Aldrich | I7508 | |
| NaCl | Sigma-Aldrich | S5886 | |
| NaH2PO4 | Sigma-Aldrich | S5011 | |
| NaHCO3 | Sigma-Aldrich | S4219 | |
| أحماض أمينية غير أساسية MEM | Sigma-Aldrich | M7145 | |
| بنتابيوتيك | Zoetis | 10005048 | قارورة 2,400,000 IU. |
| طبق بتري 35 مم (مختبر للأجنة) | Corning | 430165 | |
| طبق بتري 60 مم (مختبر للأجنة) | Corning | 430196 | |
| أحمر الفينول | Sigma-Aldrich | P0290 | |
| رؤوس ماصات 1000 µL | Eppendorf | 9401030 | |
| رؤوس ماصات 200 µL | Eppendorf | 94052300 | |
| رؤوس ماصات بدون مرشح (0.5–10 µL) | Axygen | T-300 | |
| بولي (كحول الفينيل) (PVA) | Sigma-Aldrich | P8136 | |
| بروناز (بروتياز من S. griseus) | Sigma-Aldrich | P8811 | |
| لاكتات الصوديوم | Sigma-Aldrich | L7900 | |
| بيروفات الصوديوم | Sigma- Aldrich | P4562 | |
| مجهر ستيريو | Nikon | SMZ800 | |
| ماء معقم مختبر للأجنة | Sigma-Aldrich | W3500 | |
| مرشح معقم (0.22 μm) | Corning | 431154 | |
| TCM-199 | Sigma-Aldrich | M2154 | |
| حاضنة ثلاثية الغازات (5% O2, 5% CO2, 90% N2) | WTA medical | REF. 23578 | |
| تريبسين-EDTA (0.25%) | Gibco / Thermo Fisher | 25200056 | |
| ماء فائق النقاءá | Sigma-Aldrich | W3500 | |
| مصباح UV / وحدة فلورسنت | Leica / Olympus | Varies | تعريض قصير للأشعة فوق البنفسجية للتحقق من إزالة النواة؛ مع تقليل السمية الضوئية |
المراجع
- Flagstad O, Roed KH. Refugial origins of reindeer (Rangifer tarandus.) inferred from mitochondrial DNA sequences. Evolution. 2003;57(3):658-70.
- Schilling AM, Rössner GE. The (sleeping) beauty in the beast—a review on the water deer, Hydropotes inermis. Hystrix It J Mamm. 2017;28(2):121-33.
- Newman BA, D’Angelo GJ. A review of cervidae visual ecology. Animals (Basel). 2024;14(3):420.
- Rola LD. Integrating cryobiology and conservation: the role of biobanks for neotropical deer in Latin America. Biopreserv Biobank. 2025;23(6):575-88.
- Duarte JMB, González S, Maldonado JE. The surprising evolutionary history of South American deer. Mol Phylogenet Evol. 2008;49:17-22.
- Bernegossi AM, et al. Resurrection of the genus Subulo. for the gray brocket deer, with designation of a neotype. J Mammal. 2023;104(3):619-33.
- Morales-Donoso JA, et al. Revalidation of Passalites Gloger, 1841 for the Amazon brown brocket deer P. nemorivagus. (Cuvier, 1817) (Mammalia, Artiodactyla, Cervidae). ZooKeys. 2023;1167:241-64.
- El Bizri HR. Exposing illegal hunting and wildlife depletion in the world's largest tropical country through social media data. Conserv Biol. 2024;38:e14334.
- Pasquariello R, et al. Use of assisted reproductive technologies (ARTs) to shorten the generational interval in ruminants: current status and perspectives. Theriogenology. 2024;225(1):16-32.
- Herrick JR. Assisted reproductive technologies for endangered species conservation: developing sophisticated protocols with limited access to animals with unique reproductive mechanisms. Biol Reprod. 2019;100:1158-70.
- Iqbal A, et al. Conservation of endangered species through somatic cell nuclear transfer (SCNT). Conserv Genet Resour. 2021;13:349-57.
- Hwang I. Successful cloning of coyotes through interspecies somatic cell nuclear transfer (iSCNT) using domestic dog oocytes. Biol Reprod. 2012;87(1):56.
- Loi P, et al. Genetic rescue of an endangered mammal by cross-species nuclear transfer using post-mortem somatic cells. Nat Biotechnol. 2001;19:962-4.
- Gómez MC, et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning Stem Cells. 2004;6:247-58.
- Wani NA, Vettical BS, Hong SB. First cloned Bactrian camel (Camelus bactrianus.) calf produced by interspecies somatic cell nuclear transfer: a step towards preserving the critically endangered wild Bactrian camels. PLoS One. 2017;12:e0177800.
- Ross PJ, Cibelli JB. Bovine somatic cell nuclear transfer. Methods Mol Biol. 2010;636:155-77.
- Choi YH, Velez IC, Macias-Garcia B, Hinrichs K. Timing factors affecting blastocyst development in equine somatic cell nuclear transfer. Cell Reprogram. 2015;17:124-30.
- Herrid H, Van Eenennaam H. Application of zona-free cloning technologies to livestock breeding programmes. Anim Reprod Sci. 2026;287:108107.
- Aguila L, et al. Oocyte selection for in vitro embryo production in bovine species: noninvasive approaches for new challenges of oocyte competence. Animals. 2020;10:2196.
- Vajta G, et al. New method for culture of zona-included or zona-free embryos: the well of the well (WOW) system. Mol Reprod Dev. 2000;55(3):256-64.
- Lagutina I, Fulka H, Lazzari G, Galli C. Interspecies somatic cell nuclear transfer: advancements and problems. Cell Reprogram. 2013;15:374-84.
- Folch J, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica pyrenaica.) by cloning. Theriogenology. 2009;71:1026-34.
- Loi P, Saragusty J, Ptak G. Cloning the mammoth: a complicated task or just a dream. Adv Exp Med Biol. 2014;753:489-502.
- Mastromonaco GF, et al. The influence of nuclear content on developmental competence of gaur cattle hybrid in vitro fertilized and somatic cell nuclear transfer embryos. Biol Reprod. 2007;76:514-23.
- Kim MK, et al. Endangered wolves cloned from adult somatic cells. Cloning Stem Cells. 2007;9:130-7.
- Lanza RP, et al. Cloning of an endangered species (Bos gaurus.) using interspecies nuclear transfer. Cloning. 2000;2(2):79-90.
- Hill J, et al. The effect of donor cell serum starvation and oocyte activation compounds on the development of somatic cell cloned embryos. Cloning. 1999;1:201-8.
- Verma G, et al. Handmade cloning: recent advances, potential and pitfalls. J Anim Sci Biotechnol. 2015;6:43.
- Takenaka M, Horiuchi T, Yanagimachi R. Effect of light on development of mammalian zygote. Proc Natl Acad Sci U S A. 2007;104:14289-93.
- Madani S, Machaty Z, Vajta G. An alternative way to improve mammalian embryo development in vitro: culture of zona pellucida-free embryos. Cell Reprogram. 2022;24(3):111-7.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً