تدمج هذه الدراسة بين علم الصيدلة الشبكي، والارتباط الجزيئي الذي تم التحقق من صحته، والتجارب in vitro لتقييم العلاقات المحتملة بين المركبات والأهداف بين مكونات Cordyceps sinensis والعمليات المرتبطة بالتهاب كبيبات الكلى المزمن. تم اختيار β-Sitosterol للتحقق من الصحة على مستوى المركب، ووُجد أنه يقلل من التنشيط الالتهابي والمحفز للتليف في نماذج الخلايا الميزانجيالية.
مقالة منهجية
تقييم موجه بالشبكة لمركب $\beta$-sitosterol في نماذج خلايا الميزانجيوم الالتهابية والمحفزة للتليف ذات الصلة بالتهاب كبيبات الكلى المزمن
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
يتميز التهاب كبيبات الكلى المزمن (CGN) بإصابة التهابية مستمرة وإعادة تشكيل تليفي تدريجي، ومع ذلك لا تزال العلاقات بين المركبات والأهداف الكامنة وراء التدخلات القائمة على المنتجات الطبيعية غير محددة بشكل كامل. دمجت هذه الدراسة بين علم الصيدلة الشبكي، والرسو الجزيئي الذي تم التحقق من صحته، وتجارب in vitro لتقييم المكونات المرشحة من فطر Cordyceps sinensis (C. sinensis) في العمليات المرضية المرتبطة بالتهاب كبيبات الكلى المزمن. تم فحص المكونات المرشحة لـ C. sinensis، وتم تقاطع الأهداف المرتبطة بالمركبات والمستمدة من "منصة تحليل وقاعدة بيانات علم الصيدلة النظمي للطب الصيني التقليدي" مع الجينات المرتبطة بـ CGN. واستُخدمت تحليلات الإثراء الوظيفي وتفاعل البروتين-بروتين لتحديد أولويات العمليات البيولوجية والأهداف المحورية. وتم تحديد PTGS2 كهدف مشترك رئيسي. أُجري الرسو الجزيئي باستخدام بنية COX-2 المرتبطة بـ celecoxib. وأدى إعادة رسو ليجاند celecoxib المشترك في البلورة إلى إعادة إنتاج الوضع البلوري بقيمة RMSD تبلغ 0.876 Å، مما يدعم بروتوكول الرسو. وأظهر كل من β-Sitosterol وlinoleyl acetate توافقاً متوقعاً مع منطقة رسو COX-2، بتقاربات ارتباط بلغت −7.2 و −7.5 kcal/mol على التوالي. تم اختيار β-Sitosterol للتحقق على مستوى المركب في خلايا ميزانجيوم كبيبات الكلى لجرذان HBZY-1. وعند تركيز 0.5–10 µM، لم يؤدِ β-sitosterol إلى خفض ملحوظ في حيوية الخلايا. وفي الخلايا المحفزة بـ Lipopolysaccharide (LPS)، خفض β-sitosterol تعبير Tnf و Il6 و Ptgs2، وقلل من إنتاج prostaglandin E2 (PGE2)، وخفض وفرة بروتين cyclooxygenase-2 (COX-2). وفي الخلايا المعالجة بـ transforming growth factor β1 (TGF-β1)، خفض β-sitosterol تعبير Col1a1 و Acta2 وقلل من وفرة بروتين alpha-smooth muscle actin (α-SMA). توفر هذه النتائج أدلة لتوليد الفرضيات بأن β-sitosterol ينظم التنشيط الالتهابي والمحفز للتليف في نماذج خلايا الميزانجيوم، ولكنها لا تثبت التثبيط الإنزيمي المباشر لـ COX-2 أو الفعالية العلاجية في CGN.
المقدمة
يشتمل التهاب كبيبات الكلى المزمن (CGN) على مجموعة غير متجانسة من اضطرابات الكبيبات التي يمكن أن تتطور إلى مرض الكلى المزمن ومرحلة الفشل الكلوي النهائي1. ويتميز هذا المرض بإصابة مستمرة في الكبيبات، وتنشيط التهابي، وإعادة تشكيل تليفية تصاعدية2,3. وعلى الرغم من استخدام الكورتيكوستيرويدات والعوامل المثبطة للمناعة في حالات مختارة من المرضى، إلا أن السيطرة على المرض على المدى الطويل تظل صعبة في كثير من الحالات، كما تشيع الآثار الجانبية المرتبطة بالعلاج1,4,5. يتضمن تطور التهاب كبيبات الكلى المزمن عمليات مرضية متفاعلة، بما في ذلك التنشيط المناعي، والخلل الوظيفي البطاني، والإجهاد التأكسدي، وتراكم المصفوفة خارج الخلية3,6,7. لذا، فإن تحديد العقد الجزيئية التي تربط بين الاستجابات الالتهابية والمحفزة للتليف قد يساعد في صياغة فرضيات قابلة للاختبار لاستراتيجيات التدخل ذات الصلة بالمرض.
Cordyceps sinensis (C. sinensis) استُخدم في سياقات سريرية وتجريبية متعلقة بالكلى، وأُفيد بأن له تأثيرات مضادة للالتهابات، ومضادة لموت الخلايا المبرمج، وواقية للخلايا في العديد من نماذج الأمراض8,9,10. ومع ذلك، لا تزال الأسس الجزيئية التي قد تتفاعل من خلالها مكوناته المرشحة مع الأهداف ذات الصلة بالتهاب كبيبات الكلى غير محددة بشكل كافٍ11. وبالنظر إلى الطبيعة متعددة المكونات لـ C. sinensis والتباين الميكانيكي لـ CGN، توفر علم الصيدلة الشبكي إطاراً مفيداً لتحديد أولويات العلاقات المرشحة بين المركب والهدف والمسار12,13.
في هذه الدراسة، تم دمج مسح المركبات، واسترجاع الأهداف، وتحليل التقاطع بين المرض والجين، والإثراء الوظيفي، وتحليل شبكة التفاعل بين البروتينات، والرسو الجزيئي، والتحقق in vitro لاستكشاف العلاقات الجزيئية المحتملة بين المكونات المرشحة لنبات C. sinensis والعمليات المرضية ذات الصلة بمرض CGN. تم تحديد سينثيز بروستاجلاندين-إندوبيروكسيد 2 (PTGS2) كهدف محوري من شبكة المركب-المرض، وتم تقييمه عن طريق الرسو الجزيئي باستخدام بنية سيكلوأكسجيناز-2 (COX-2) المرتبطة بمركب celecoxib مع التحقق من خلال إعادة الرسو. وبناءً على نتائج الشبكة، وتحليل الرسو، والأدلة السابقة على النشاط المضاد للالتهابات والمضاد للتليف، تم اختيار β-sitosterol كمركب مرشح ممثل للتحقق اللاحق14,15,16. استُخدمت الخلايا الميزانجيالية المحفزة بـ Lipopolysaccharide (LPS) لتقييم التنشيط الالتهابي والاستجابة المرتبطة بـ COX-2/prostaglandin E2 (PGE2)، بينما تم إدراج نموذج محفز بـ transforming growth factor β1 (TGF-β1) لتقييم تعبير مؤشرات التليف.
البروتوكول
استندت تحليلات الصيدلة الشبكية والمعلوماتية الحيوية إلى قواعد بيانات متاحة للعموم ولم تشمل مشاركين بشريين أو حيوانات. وقد أجريت التجارب in vitro باستخدام خط خلوي معتمد ولم تتطلب موافقة أخلاقية وفقاً للمتطلبات المؤسسية.
فحص المكونات المرشحة واستعادة الهدف
تَمَّ استرداد المكونات المرشحة وأهدافها المقابلة من منصة تحليل وقاعدة بيانات فارماكولوجيا نظم الطب الصيني التقليدي (TCMSP) باستخدام مصطلح البحث “dongchongxiacao” في 13 يوليو 2025. وقد تم الاحتفاظ بالمركبات التي بلغت التوافر الحيوي الفموي المتوقع لها 30% على الأقل، والتشابه الدوائي (drug-likeness) بنسبة 0.18 على الأقل. واستوفت سبعة مكونات مرشحة كلا معياري الفرز. كما سُجل الوزن الجزيئي، والتوافر الحيوي الفموي، والتشابه الدوائي، وغيرها من واصفات الحركية الدوائية المتاحة من TCMSP لإجراء مقارنة وصفية.
تم تنزيل معلومات المركب-الهدف المرتبطة بالمكونات المستبقاة مباشرة من TCMSP. تمت إزالة إدخالات الأهداف المكررة يدويًا عند بناء مجموعة الأهداف غير المتكررة، بينما تم الاحتفاظ بعلاقات المركب-الهدف الأصلية لبناء الشبكة لاحقًا. ونظرًا لأن TCMSP وفرت أسماء الأهداف في صيغتها الكاملة بدلاً من رموز جينية موحدة، فقد تم البحث عن كل هدف في قاعدة بيانات UniProt (تم الدخول إليها في 14 يوليو 2025). وقد تم اختيار الإدخال البشري المقابل، وتحويل اسم الهدف إلى رمزه الجيني الرسمي. واستُخدمت مجموعة بيانات المركب-الهدف الموحدة لتحليل تقاطع المرض-الهدف وتحليل شبكة المركب-الهدف.
تجميع الجينات المرتبطة بالتهاب كبيبات الكلى وتقاطع الأهداف
تم استرجاع الجينات المرتبطة بالمرض من GeneCards وDisGeNET وPharmGKB وTherapeutic Target Database باستخدام مصطلح البحث "glomerulonephritis" في 14 يوليو 2025. وبالنسبة لـ GeneCards، تم الاحتفاظ بالمدخلات التي تزيد درجات صلتها عن الدرجة المتوسطة البالغة 10. كما تم تضمين المدخلات المؤهلة من قواعد البيانات الأخرى وفقاً لتعليقات المرض-الهدف المنسقة الخاصة بها. وتم توحيد أسماء الجينات وفقاً لرموز الجينات البشرية الرسمية، مع إزالة المدخلات المكررة. وأسفر هذا الإجراء عن تحديد 1,134 جيناً فريداً مرتبطاً بـ glomerulonephritis. ونظراً لأن البحث استخدم المصطلح الأعم "glomerulonephritis"، فقد اعتبرت مجموعة البيانات الناتجة ذات صلة بالعمليات الجزيئية المرتبطة بـ chronic glomerulonephritis بدلاً من أن تكون محددة بنمط نسيجي مرضي واحد.
تم تقاطع الأهداف المرتبطة بالمركبات والمستمدة من TCMSP مع مجموعة الجينات المرتبطة بالمرض باستخدام لغة R. وقد تم تحديد ثلاثة وعشرين هدفاً متداخلة. كما تم إنشاء مخططات فين باستخدام حزمة R المسماة venn، وتم بناء شبكة الأهداف المتداخلة للمركبات وتصورها باستخدام برنامج Cytoscape. وتتلخص العلاقات بين المكونات المرشحة والأهداف المتداخلة في الجدول 1.
تحليلات الإثراء الوظيفي والتفاعل بين البروتينات
تم إجراء تحليلات الإثراء لـ Gene Ontology (GO) وKyoto Encyclopedia of Genes and Genomes (KEGG) في بيئة R باستخدام clusterProfiler وorg.Hs.eg.db. وحُللت مصطلحات Gene Ontology ضمن فئات العملية البيولوجية، والمكون الخلوي، والوظيفة الجزيئية. كما تم تعديل قيم P للاختبارات المتعددة باستخدام طريقة Benjamini-Hochberg، وتم الاحتفاظ بالمصطلحات أو المسارات التي كانت قيم P المعدلة لها أقل من 0.05. وعُرِضت المصطلحات والمسارات المثرى باستخدام مخططات شريطية ومخططات نقطية تم إنشاؤها بشكل مستقل.
تم إدخال الأهداف الـ 23 المتداخلة في قاعدة بيانات STRING، مع اختيار Homo sapiens ككائن حي وتحديد الحد الأدنى لدرجة التفاعل بأكثر من 0.4. ثم استوردت شبكة تفاعلات البروتين-بروتين الناتجة إلى برنامج Cytoscape. وتم تقييم طوبولوجيا الشبكة باستخدام CytoNCA بناءً على درجة الاتصال (degree)، والمركزية البينية (betweenness)، والمركزية التقاربية (closeness)، ومركزية المتجه الذاتي (eigenvector centrality)، ومتوسط الاتصال المحلي (local average connectivity)، ومركزية الشبكة (network centrality). عُرِّفت الأهداف المركزية (Hub targets) بأنها العقد التي كانت قيم درجة الاتصال، والمركزية البينية، والمركزية التقاربية، ومركزية المتجه الذاتي، ومتوسط الاتصال المحلي، ومركزية الشبكة فيها جميعاً أكبر من القيم الوسيطة المقابلة لها في الشبكة. وقد أدى هذا التحليل إلى تحديد تسعة أهداف مركزية ذات أولوية للتفسير اللاحق.
الالتحام الجزيئي والتحقق من صحة إعادة الالتحام
أُجري الإرساء الجزيئي باستخدام بنية سيكلوأكسيجيناز-2 المرتبطة بـ celecoxib ذات المعرف PDB ID 3LN1. تم الاحتفاظ بالسلسلة A ومجموعة الهيم المرتبطة بها كمستقبل، بينما أُزيلت جزيئات الماء البلورية ورابط celecoxib الذي تم بلورته مع البروتين أثناء تحضير المستقبل. استُخلص التشكيل الأصلي لـ celecoxib بشكل منفصل من السلسلة A لغرض التحقق من صحة إعادة الإرساء. أُضيفت ذرات الهيدروجين القطبية وشحنات Gasteiger باستخدام AutoDockTools، وحُفظ المستقبل بتنسيق PDBQT. يمثل PDB ID 3LN1 بنية بدقة 2.40 Å لـ COX-2 الفأري المرتبط بـ celecoxib. تم الحصول على بنيات β-sitosterol و linoleyl acetate من PubChem وحُضرت باستخدام Open Babel. أُضيفت ذرات الهيدروجين وشحنات Gasteiger الجزئية، وحُددت الروابط القابلة للدوران، وحُوّل كل رابط إلى تنسيق PDBQT. أُجري إرساء لكل من celecoxib و β-sitosterol و linoleyl acetate باستخدام AutoDock Vina مع استخدام نفس المستقبل ومعايير البحث.
تم تمركز صندوق الإرساء (docking box) على منطقة ارتباط celecoxib الأصلية باستخدام الإحداثيات التالية: center_x = 30.9886 center_y = -22.2836 center_z = -16.5072 size_x = 26 Å size_y = 26 Å size_z = 26 Å. وقد تم ضبط قيمة الشمولية (exhaustiveness) عند 16، وعدد أنماط المخرجات (output modes) عند 10، ونطاق الطاقة عند 3 kcal/mol. وتم الاحتفاظ بالوضعية (pose) الأعلى تصنيفاً بناءً على أدنى طاقة ارتباط متوقعة لغرض التصوير المرئي. وللتحقق من صحة البروتوكول، تمت إعادة إرساء celecoxib الأصلي تحت نفس الظروف، وحُسب متوسط مربع الانحراف (root mean square deviation) للذرات الثقيلة بين وضعيات البلورة والوضعيات المعاد إرساؤها باستخدام برنامج PyMOL. واعتُبر متوسط مربع الانحراف الذي يقل عن 2 Å إعادة إنتاج مقبولة للوضعية المرجعية. كما تم تحديد البقايا (residues) الواقعة ضمن نطاق 4 Å من كل ربيطة (ligand) تم إرساؤها في برنامج PyMOL. وتم تفسير درجات ووضعيات الإرساء كتقديرات للتوافق البنيوي وليس كدليل مباشر على الارتباط بالهدف أو التثبيط الإنزيمي.
زراعة الخلايا وتحضير المركبات
تمت زراعة خلايا ميزانجيوم الكبيبة الكلوية للجرذ من سلالة HBZY-1 في وسط Dulbecco’s modified Eagle المعدل عالي الجلوكوز والمكمل بـ 10% مصل جنين البقري و1% بنسيلين-ستريبتومايسين عند درجة حرارة 37 °C في ظروف رطبة مع 5% CO₂. استُخدمت الخلايا في الممرات من 2–7 لجميع التجارب، وتم التحقق من خلوها من الميكوبلازما قبل الاستخدام. استُخدم كل من β-Sitosterol وcelecoxib كمركبات محددة كيميائياً. أُذيب β-Sitosterol في الإيثانول المطلق لتحضير محلول مخزون بتركيز 10 mM (حوالي 4.15 mg/mL). وعند الحاجة، أجري تسونيك (sonication) قصير والتدفئة إلى 50–60 °C للحصول على محلول رائق بصرياً. أُذيب celecoxib في ثنائي ميثيل سلفوكسيد لتحضير محلول مخزون بتركيز 10 mM (حوالي 3.81 mg/mL). قُسمت المحاليل المخزونة إلى حصص وتم تخزينها عند −20 °C. وقبل المعالجة، خُففت المحاليل المخزونة مباشرة في وسط زراعة مُدفأ مسبقاً ومُزجت على الفور.
تمت مطابقة تركيزات المذيبات (Vehicle) ضمن كل تجربة. في مقايسة حيوية الخلايا، تم ضبط التركيز النهائي للإيثانول ليكون 0.2% v/v في جميع المجموعات لأن أعلى تركيز تم اختباره من β-sitosterol كان 20 µM. وفي تجربة الالتهاب المستحث بواسطة LPS، تم ضبط التركيزات النهائية للإيثانول وdimethyl sulfoxide لتكون 0.1% و0.01% v/v، على التوالي، في جميع المجموعات. أما في تجربة التليف المستحث بواسطة TGF-β1، فقد تم ضبط التركيز النهائي للإيثانول ليكون 0.1% v/v في جميع المجموعات. كما تمت إضافة أحجام مكافئة من المذيبات المقابلة إلى مجموعات Control وLPS وTGF-β1.
مقايسة حيوية الخلايا
وُزعت الخلايا في أطباق ذات 96 بئراً بكثافة 5 × 10³ خلية لكل بئر في 100 µL من الوسط الغذائي الكامل، وتُركت لتلتصق لمدة 24 h. ولتقدير نطاق تركيز β-sitosterol، حُضنت الخلايا مع 0.5 أو 1 أو 5 أو 10 أو 20 µM من β-sitosterol لمدة 24 h. أما بالنسبة لاختبار حيوية الخلايا المرتبط بـ LPS، فقد عولجت الخلايا مسبقاً بـ β-sitosterol بتركيز 1 أو 5 أو 10 µM لمدة 2 h، ثم عُرّضت لـ 1 µg/mL من lipopolysaccharide لمدة 24 h إضافية.
كانت مجموعات المعالجة هي المجموعة الضابطة، وβ-sitosterol بتركيز 0.5 µM، وβ-sitosterol بتركيز 1 µM، وβ-sitosterol بتركيز 5 µM، وβ-sitosterol بتركيز 10 µM، وβ-sitosterol بتركيز 20 µM، وLPS، وLPS مع β-sitosterol بتركيز 1 µM، وLPS مع β-sitosterol بتركيز 5 µM، وLPS مع β-sitosterol بتركيز 10 µM. أضيف كاشف Cell Counting Kit-8 بمقدار 10 µL لكل بئر، وحُضنت الأطباق لمدة 2 h. ثم سُجلت الامتصاصية عند 450 nm. تم تحديد حيوية الخلايا بعد طرح قيمة الفراغ الخالي من الخلايا، وعُبّر عنها بالنسبة إلى المجموعة الضابطة. تضمنت كل حالة ستة آبار تقنية في كل تجربة من ست تجارب بيولوجية مستقلة. وتم حساب متوسط قيم الآبار التقنية من كل تجربة لإنتاج قيمة مكرر بيولوجي واحد للتحليل الإحصائي.
التنشيط الالتهابي الناجم عن LPS
بالنسبة لتجارب التنشيط الالتهابي، تم استزراع خلايا HBZY-1 في أطباق ذات 6 آبار بكثافة 2 × 10⁵ خلية لكل بئر، وعولجت بعد وصولها إلى درجة تلاقي تتراوح تقريباً بين 70%–80%. تم الحفاظ على الخلايا في وسط مغذٍ مضاف إليه 1% من مصل جنين البقر لمدة 12 h قبل المعالجة. تم إعطاء β-Sitosterol أو celecoxib قبل 2 h من التحفيز بواسطة LPS. بعد ذلك، عُرِضت الخلايا لـ 1 µg/mL من LPS لمدة 24 h.
تمثلت المجموعات التجريبية في مجموعة ضابطة، ومجموعة β-sitosterol بتركيز 10 µM، ومجموعة LPS، ومجموعة LPS بالإضافة إلى β-sitosterol بتركيز 1 µM، ومجموعة LPS بالإضافة إلى β-sitosterol بتركيز 5 µM، ومجموعة LPS بالإضافة إلى β-sitosterol بتركيز 10 µM، ومجموعة LPS بالإضافة إلى celecoxib بتركيز 1 µM. تم إدراج celecoxib كضابط موجب وظيفي لتثبيط إنتاج البروستاجلاندين المعتمد على COX-2. وفي نهاية فترة المعالجة، جُمعت السوائل الطافية من المزارع لقياس PGE2. كما جُمعت الخلايا بشكل منفصل لإجراء تحليل PCR الكمي في الوقت الحقيقي لـ Tnf و Il6 و Ptgs2، ولإجراء تحليل western blot لـ COX-2.
التنشيط المحفز للتليف بواسطة TGF-β1
تم استخدام نموذج منفصل محفز بواسطة TGF-β1 لتقييم التنشيط المسبب للتليف. زُرعت خلايا HBZY-1 في أطباق ذات 6 آبار بكثافة 2 × 10⁵ خلية لكل بئر، وحُفظت في وسط مُدعم بـ 1% مصل جنين البقر لمدة 12 h قبل المعالجة. عولجت الخلايا مسبقاً بـ β-sitosterol لمدة 2 h، تلا ذلك التحفيز باستخدام 10 ng/mL من TGF-β1 المؤتلف لمدة 48 h.
شملت مجموعات المعالجة مجموعة ضابطة، وβ-sitosterol (10 µM)، وTGF-β1، وTGF-β1 + β-sitosterol (5 µM)، وTGF-β1 + β-sitosterol (10 µM). وفي نهاية فترة المعالجة، تم حصاد الخلايا لإجراء تحليل PCR الكمي في الوقت الحقيقي لكل من Col1a1 وActa2 ولإجراء تحليل لطخة ويسترن لبروتين alpha-smooth muscle actin (α-SMA).
تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي
تم عزل الحمض النووي الريبوزي الكلي (Total RNA) من الخلايا المعالجة باستخدام كاشف لاستخلاص الـ RNA يعتمد على الفينول والغوانيدينيوم وفقاً لبروتوكول الشركة المصنعة. وقد تم تحديد تركيز الـ RNA ونقاوته باستخدام مقياس الطيف الضوئي. واستُخدمت فقط العينات التي تراوحت نسبة A260/A280 فيها بين 1.8–2.0 لعملية النسخ العكسي. وبالنسبة لكل عينة، تم تحويل 1 µg من الـ RNA الكلي عن طريق النسخ العكسي إلى حمض نووي ريبوزي منقوص الأكسجين مكمل (complementary DNA) في حجم تفاعل نهائي قدره 20 µL. ثم خُفف الـ complementary DNA الناتج بمقدار خمسة أضعاف باستخدام ماء خالٍ من النيوكلياز قبل إجراء تفاعل البوليميراز المتسلسل الكمي (quantitative PCR). أُجري تفاعل الـ quantitative PCR في حجم كلي قدره 20 µL يحتوي على 10 µL من 2× SYBR Green master mix، و0.4 µL من كل من البادئات الأمامية والعكسية بتركيز 10 µM، و2 µL من الـ complementary DNA المخفف، و7.2 µL من الماء الخالي من النيوكلياز. وتضمنت ظروف التضخيم خطوة مسخ أولية عند 95 °C لمدة 30 s، تلتها 40 دورة من المسخ عند 95 °C لمدة 5 s، والارتباط-التمديد عند 60 °C لمدة 30 s. وأُجري بعد ذلك تحليل لمنحنى الانصهار من 65 °C إلى 95 °C للتحقق من خصوصية التضخيم.
كانت الجينات التي تم قياسها هي Tnf وIl6 وPtgs2 وCol1a1 وActa2 وGapdh. وقد استُخدم Gapdh كجين مرجعي داخلي. تم تحديد التعبير الجيني النسبي باستخدام طريقة 2−ΔΔCt، مع استخدام مجموعة الضبط كمعاير. تتوفر تسلسلات البادئات في الجدول التكميلي 1. تم تحليل كل عينة في ثلاث مكررات تقنية، وأجريت ست تجارب بيولوجية مستقلة. تم حساب متوسط القيم التي تم الحصول عليها من المكررات التقنية قبل إجراء التحليل الإحصائي.
قياس PGE2 بواسطة المقايسة المناعية المرتبطة بالإنزيم
تم جمع طافي المزرعة بعد 24 h من التحفيز بـ LPS وطردها مركزياً عند 1,000 × g لمدة 10 min عند 4 °C لإزالة حطام الخلايا. تم تقدير تركيزات PGE2 باستخدام طقم مقايسة الممتز المناعي المرتبط بالإنزيم متاح تجارياً وفقاً لتعليمات الشركة المصنعة.
تم تحميل المعايير والعينات على لوحة المقايسة في مكررات ثنائية. وبعد الانتهاء من خطوات ربط الأجسام المضادة وتطوير اللون، تم تسجيل الامتصاصية عند 450 nm باستخدام قارئ الأطباق الدقيقة. تم تحديد تركيزات PGE2 من منحنى قياسي لوجستي رباعي المعلمات وتم التعبير عنها بـ pg/mL. كما تم تحليل السوائل الطافية من ست تجارب خلوية مستقلة. وتم حساب متوسط القياسات المكررة لكل عينة بيولوجية قبل إجراء التحليل الإحصائي.
لطخة ويسترن
تم تحلل الخلايا المعالجة في محلول منظم لمقايسة الترسيب المناعي الإشعاعي (radioimmunoprecipitation assay buffer) مضاف إليه خليط من مثبطات البروتياز. حُضنت المحللات على الثلج لمدة 30 min ثم وُضعت في جهاز الطرد المركزي بسرعة 12,000 × g لمدة 15 min عند درجة حرارة 4 °C. تم تحديد تركيزات البروتين في الرواسب الطافية باستخدام مقايسة البروتين بحمض البيسينكونينيك (bicinchoninic acid protein assay). خُلطت كميات متساوية من البروتين (30 µg لكل مسار) مع محلول التحميل ومُسخنت عند 95 °C لمدة 5 min. فُصلت البروتينات المستخلصة من تجارب LPS على هلامات بولي أكريلاميد وبيريدوديسيل كبريتات الصوديوم (sodium dodecyl sulfate-polyacrylamide gels) بتركيز 10%، بينما فُصلت البروتينات من تجارب TGF-β1 على هلامات بتركيز 12%. بعد ذلك، نُقلت البروتينات المفصولة إلى أغشية بولي فينيليدين فلوريد (polyvinylidene fluoride membranes).
تم حجب الأغشية باستخدام 5% من الحليب الخالي من الدسم في محلول ملحي منظم بالتريس يحتوي على 0.1% Tween 20 لمدة 1 h في درجة حرارة الغرفة، ثم حُضنت طوال الليل عند 4 °C مع أجسام مضادة أولية ضد COX-2 (1:1000)، و α-SMA (1:1000)، و GAPDH (1:5000). تم تحليل COX-2 في عينات من تجربة LPS، بينما تم تحليل α-SMA في عينات من تجربة TGF-β1. وبعد الغسل، حُضنت الأغشية مع أجسام مضادة ثانوية مقترنة ببيروكسيديز الفجل (1:5000) لمدة 1 h في درجة حرارة الغرفة. تم تصوير حزم البروتين باستخدام ركيزة التألق الكيميائي المحسنة والتقاطها بواسطة نظام تصوير التألق الكيميائي. كانت أوقات التعريض 10 s تقريبًا لـ COX-2، و 10 s لـ α-SMA، و 2 s لـ GAPDH.
تم تقدير كثافة الحزم باستخدام برنامج ImageJ. كما تم تطبيع إشارات COX-2 و α-SMA بالنسبة لإشارة GAPDH المقابلة. أُجري تحليل Western blotting باستخدام عينات بروتينية تم الحصول عليها من ست تجارب مستقلة لزراعة الخلايا ومعالجتها.
التحليل الإحصائي
أُجريت التحليلات الإحصائية باستخدام برنامج GraphPad Prism. وتُعرض البيانات في صورة المتوسط ± الانحراف المعياري. نُفذت ست تجارب مستقلة لزراعة الخلايا ومعالجتها لكل تحليل كمي، بحيث تمثل كل تجربة مستقلة مكرراً بيولوجياً واحداً. أما قياسات المكررات التقنية التي تم الحصول عليها من نفس التجربة البيولوجية فقد حُسب متوسطها قبل التحليل الإحصائي ولم تُعتبر ملاحظات مستقلة.
بالنسبة لمقايسة حيوية الخلايا، تضمن كل اختبار بيولوجي ست آبار تقنية لكل حالة. وأُجريت تفاعلات PCR الكمي في ثلاث مكررات تقنية لكل عينة بيولوجية، بينما أُجريت قياسات PGE2 في مكررات ثنائية. واستند التكميم في تحليل Western blot إلى ست عينات بروتينية تم تحضيرها بشكل مستقل. وبناءً على ذلك، يحتوي كل شريط تكميمي على قيم ست مكررات بيولوجية فردية.
تم تحليل الفروق بين المجموعات المتعددة باستخدام تحليل التباين أحادي الاتجاه، متبوعاً باختبار توكي للمقارنات المتعددة. وتم استخدام اختبار ثنائي الجانب P قيمة < اعتبرت القيمة 0.05 دالة إحصائياً. وعُرِضت قيم المكررات البيولوجية الفردية جنباً إلى جنب مع المتوسط والانحراف المعياري.
النتائج
فحص المكونات المرشحة، واسترجاع الأهداف، وتقاطع الأهداف
تم تلخيص سير العمل لتحديد الأهداف المتداخلة المرشحة بين المركب والمرض في الشكل 1A. استوفت سبعة مركبات مرشحة من C. sinensis معايير الفحص المحددة مسبقاً وهي OB ≥30% وDL ≥0.18، وشملت حمض الأراشيدونيك، وأسيتات اللينوليل، وβ-sitosterol، وperoxyergosterol، وcerevisterol، وcholesteryl palmitate، وCLR (الجدول 2). وبالتوازي مع ذلك، تم استرجاع 1,134 جيناً مرتبطاً بالتهاب كبيبات الكلى من GeneCards وDisGeNET وPharmGKB وTTD، ويوضح الشكل 1B توزيعها عبر هذه القواعد البيانات الأربعة. وقد حدد تحليل التقاطع بين مجموعة الأهداف المرتبطة بالمركبات ومجموعة الجينات المرتبطة بالمرض 23 هدفاً متداخلاً (الجدول 1، الشكل 1C). وتظهر شبكة المركب والأهداف المتداخلة المقابلة في الشكل 1D، مما يوضح العلاقات بين المركبات المرشحة التمثيلية، والأهداف المتداخلة، وCGN. تضمنت هذه الأهداف المتداخلة عدة جينات مرتبطة بالتنظيم الالتهابي، والموت الخلوي المبرمج، والتأشير المرتبط بالأوعية الدموية، مثل PTGS2 وCASP3 وMAPK1 وPPARG وTNFRSF1A وNOS3.
تحليلات الإثراء الوظيفي والتفاعلات البروتينية-البروتينية
لبحث الأهمية البيولوجية للأهداف الـ 23 المتداخلة، تم إجراء تحليلات إثراء لمصطلحات GO ومسارات KEGG. وكشفت النتائج أن هذه الأهداف تتركز بشكل ملحوظ في مسارات متعددة مرتبطة بالالتهابات والتمثيل الغذائي.
صنف تحليل GO الأهداف إلى فئات العملية البيولوجية (BP)، والمكون الخلوي (CC)، والوظيفة الجزيئية (MF). وتضمنت مصطلحات BP الأكثر إثراءً بشكل ملحوظ الاستجابة لـ lipopolysaccharide، والاستجابة للجزيئات ذات الأصل البكتيري، وتنظيم عمليات الجهاز العضلي. أما على المستوى الخلوي، فقد كانت الأهداف مُثرية في مقصورات membrane raft وcaveola والجسيمات الحبيبية ألفا في الصفائح الدموية، بينما أشارت مصطلحات MF مثل نشاط oxidoreductase والارتباط بالمستقبلات النووية إلى أدوار إضافية في الإجهاد التأكسدي والتنظيم النسخي (الشكل 2A).
كشف تحليل KEGG أن مسار الدهون وتصلب الشرايين (hsa05417) كان الأكثر إثراءً بشكل ملحوظ (q-value < 1 × 10⁻⁶)، إلى جانب مسارات أخرى مثل تأشير AGE–RAGE في مضاعفات السكري، وتأشير TNF، وتأشير IL-17، وتأشير HIF-1 (الشكل 2B). والجدير بالذكر أن مسار الدهون وتصلب الشرايين شمل 10 من أصل 23 هدفاً، بما في ذلك CASP3 وMAPK1 وPPARG وNOS3 وTNFRSF1A.
تشير نتائج الإثراء هذه مجتمعة إلى أن الأهداف المتداخلة مرتبطة وظيفيًا بالعمليات البيولوجية المتعلقة بالالتهابات والاستجابة للإجهاد والبطانة الغشائية ذات الصلة بـ CGN.
تحليل شبكة التفاعلات البروتينية-البروتينية
تم بناء شبكة تفاعلات البروتين-بروتين (PPI) للأهداف المتداخلة الـ 23 باستخدام STRING، مما نتج عنه شبكة تحتوي على 23 عقدة و102 حافة (الشكل 3A). وحدد التحليل الطوبولوجي باستخدام CytoNCA تسعة أهداف مركزية عالية الاتصال وهي: PTGS2 وMAPK1 وPPARG وCASP3 وEGF وJUN وPECAM1 وBCL2 وPRKCA (الشكل 3B). ومن بين هذه الأهداف، أظهر PTGS2 مركزية بارزة في الشبكة، وبناءً على ذلك تم اختياره لتحليل الالتحام الجزيئي اللاحق. تسلط هذه النتائج الضوء على مجموعة فرعية من المنظمات المرشحة ذات الأولوية في الشبكة والتي قد تكون ذات صلة بنقطة التقاطع بين المركب والمرض.
الالتحام الجزيئي والتحقق من صحة إعادة الالتحام
لإجراء مزيد من التقييم للمعقولية الهيكلية للعلاقات المرشحة المرتبطة بـ PTGS2 والتي تم تحديدها من خلال تحليل الشبكة، تم إجراء الالتحام الجزيئي باستخدام بنية COX-2 المرتبطة بـ celecoxib. تم اختيار البنية البلورية PDB ID 3LN1 لأنها تحتوي على celecoxib مرتبط بالموقع النشط لـ COX-2، مما يوفر جيباً لربط اللجين محدد تجريبياً للتحقق من صحة الالتحام. أولاً، تم استخراج لجين celecoxib المشترك في البلورة وإعادة التحامه في نفس جيب الربط. وقد أعادت وضعية celecoxib المعاد التحامها إنتاج الوضعية البلورية بدقة، حيث بلغ جذر متوسط مربع الانحراف (RMSD) لإعادة الالتحام 0.876 Å، وكانت ألفة الربط المتوقعة -12.3 kcal/mol (الشكل 4A). وأشارت هذه النتيجة إلى أن بروتوكول الالتحام كان قادراً على إعادة إنتاج وضعية ربط اللجين المعروفة في ظل ظروف الالتحام المختارة.
باستخدام نفس المستقبل، وصندوق الشبكة، ومعايير الإرساء، تم إرساء β-sitosterol في منطقة الارتباط بـ COX-2 المحددة بواسطة celecoxib. أظهر β-sitosterol ألفة ارتباط متوقعة بلغت -7.2 kcal/mol (الشكل 4B). كانت وضعية الإرساء تقع ضمن منطقة إرساء COX-2 المحددة مسبقاً، وشملت البقايا المحيطة بوضعية إرساء β-sitosterol كلاً من ASN567 وASP333 وGLN178 وGLN336 وGLY340 وHIS337 وHIS80 وPRO500 وTHR79 وTYR341.
تم تقييم خلات اللينوليل أيضاً كمرشح حاسوبي ثانوي لأنه بقي ضمن قائمة المكونات المرشحة وكان مرتبطاً بـ PTGS2 في تحليل الشبكة. وتحت نفس ظروف الالتحام، أظهرت خلات اللينوليل ألفة ارتباط متوقعة بلغت -7.5 kcal/mol، وهي أكثر ملاءمة قليلاً من ألفة ارتباط β-sitosterol (الشكل 4C). وقد تموضع شكلها المتوقع بالقرب من الربيطة المرجعية celecoxib داخل منطقة الالتحام. وشملت البقايا المحيطة بخلات اللينوليل كل من ALA502، و ALA513، و ARG106، و ARG499، و GLN178، و GLY512، و HIS75، و ILE503، و LEU338، و LEU345، و LEU517، و MET508، و PHE504، و SER339، و SER516، و TRP373، و TYR371، و VAL102، و VAL335، و VAL509.
حيوية الخلايا، والتنشيط الالتهابي، والتنشيط المسبب للتليف
تم اختيار β-sitosterol للتحقق من فعاليته على مستوى المركب لأنه تم تحديده كمرشح مرتبط بـ PTGS2 في تحليل الشبكة، وكان هناك دعم تجريبي سابق لنشاطه المضاد للالتهابات والمضاد للتليف. تم تقييم حيوية الخلايا أولاً لتحديد نطاق التركيز المناسب للتجارب اللاحقة. لم تؤدِّ المعالجة بـ β-sitosterol بتركيزات 0.5، و1، و5، و10 µM إلى خفض حيوية الخلايا بشكل ملحوظ مقارنة بمجموعة التحكم، بينما تسبب تركيز 20 µM من β-sitosterol في انخفاض طفيف. أدى التعرض لـ LPS إلى خفض حيوية الخلايا، وأدى العلاج المشترك بـ β-sitosterol إلى تحسين حيوية الخلايا جزئياً تحت تحفيز LPS، وكان التأثير الأكثر وضوحاً عند تركيز 10 µM (الشكل 5A). وبناءً على هذه النتائج، تم استخدام تركيزات 1، و5، و10 µM من β-sitosterol في تجارب التنشيط الالتهابي اللاحقة المستحثة بـ LPS.
أدى التحفيز بـ LPS إلى زيادة ملحوظة في تعبير mRNA للجينات الالتهابية في خلايا HBZY-1. ومقارنة بالمجموعة الضابطة، أظهرت مجموعة LPS مستويات تعبير أعلى لكل من Tnf و Il6 و Ptgs2 (الشكل 5B-D). وقد قلل العلاج بـ β-sitosterol من الارتفاع في تنظيم هذه الجينات الناجم عن LPS بطريقة تعتمد على التركيز. وكان الاتجاه التثبيطي أكثر وضوحاً في المجموعة التي تلقت LPS بالإضافة إلى 10 µM من β-sitosterol. كما قلل Celecoxib، الذي أُدرج كضابط وظيفي كمثبط لـ COX-2، من تعبير الجينات الالتهابية إلى حد ما، على الرغم من أن تأثيره كان أقل وضوحاً مما لوحظ مع 10 µM من β-sitosterol لعدة علامات نسخية (الشكل 5B-D).
بما أن Ptgs2 يشفر COX-2، وبما أن PGE2 هو منتج بروستاجلاندين رئيسي ناتج عن نشاط COX-2، فقد تم قياس إفراز PGE2 بواسطة مقايسة ELISA. أدت المعالجة بـ LPS إلى زيادة تركيز PGE2 في supernatant المزرعة مقارنة بمجموعة الضبط. وخفض β-sitosterol من إنتاج PGE2 الناجم عن LPS بطريقة تعتمد على التركيز. كما خفض Celecoxib من إنتاج PGE2 وعمل كضابط موجب للتثبيط الوظيفي لمحور COX-2/PGE2 (الشكل 5E). وأظهر تحليل Western blot كذلك أن LPS زاد من وفرة بروتين COX-2. وأدت المعالجة بـ β-sitosterol إلى خفض مستويات بروتين COX-2 تحت تحفيز LPS، مع ملاحظة انخفاض أقوى عند التركيز الأعلى. وفي المقابل، خفض celecoxib من إنتاج PGE2 ولكنه أظهر تأثيراً أكثر محدودية على وفرة بروتين COX-2 (الشكل 5F).
لاستكمال نموذج الالتهاب المستحث بـ LPS، تم استخدام نموذج تنشيط تحفيزي للتليف مستحث بـ TGF-β1 لتقييم ما إذا كان β-sitosterol يؤثر على تعبير مؤشرات التليف في الخلايا الميزانجيومية. أدى TGF-β1 إلى زيادة ملحوظة في التعبير عن mRNA لكل من Col1a1 و Acta2 مقارنة بمجموعة الضبط (الشكل 6A،B). قلل β-sitosterol من الزيادة المستحثة بـ TGF-β1 في كلا المؤشرين، وكان هذا الانخفاض أكثر وضوحاً عند تركيز 10 µM منه عند تركيز 5 µM (الشكل 6A،B). وأظهر تحليل Western blot زيادة مقابلة في تعبير بروتين α-SMA بعد التحفيز بـ TGF-β1، بينما أدى العلاج بـ β-sitosterol إلى خفض وفرة بروتين α-SMA في الخلايا المعالجة بـ TGF-β1 (الشكل 6C).
توافر البيانات:
تم إيداع البيانات الخام والمعالجة التي تدعم هذه الدراسة في Zenodo تحت معرف الكائن الرقمي DOI: https://zenodo.org/records/21649482. وتتوفر صور المسح الكامل لعملية western bolt في الملف التكميلي 1.
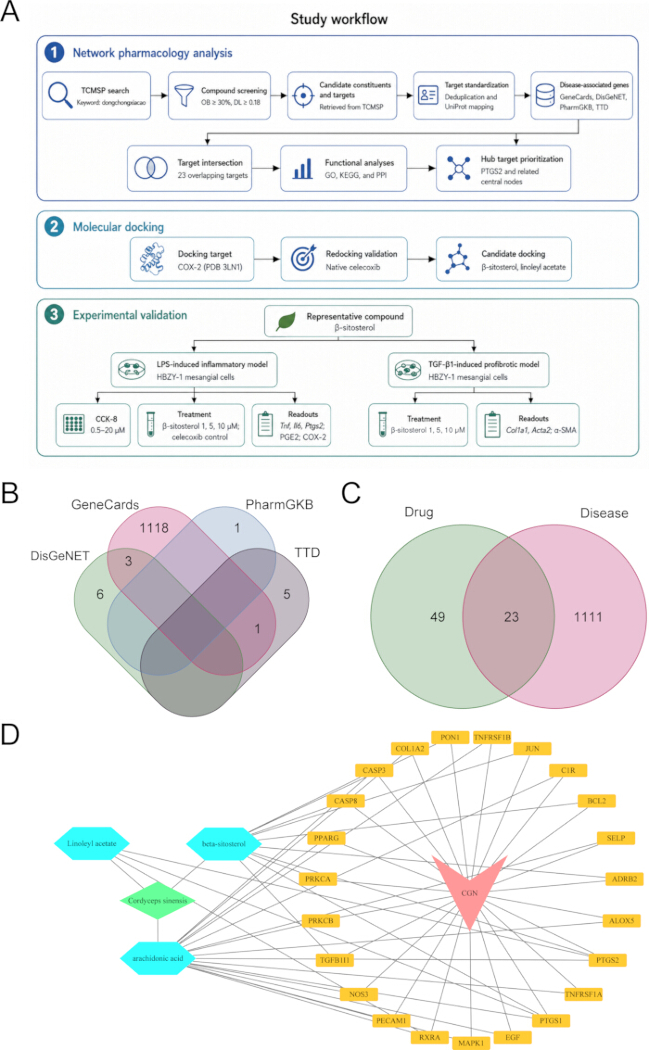
الشكل 1. سير العمل وتحديد الأهداف المتداخلة المرشحة بين المركبات والمرض لـ C. sinensis في التهاب كبيبات الكلى. (A) مخطط لسير العمل يوضح تحديد المركبات المرشحة، واسترجاع وتوحيد الأهداف المرتبطة بالمركبات، واسترجاع الجينات المرتبطة بالتهاب كبيبات الكلى، وتحليل التقاطع، وبناء شبكة الأهداف المتداخلة للمركبات. (B) مخطط فين يوضح توزيع الجينات المرتبطة بالتهاب كبيبات الكلى والمسترجعة من GeneCards و DisGeNET و PharmGKB و TTD. (C) مخطط فين يوضح التداخل بين الأهداف المرتبطة بالمركبات والمشتقة من TCMSP والجينات المرتبطة بالمرض، مما أسفر عن 23 هدفاً متداخلاً. (D) شبكة الأهداف المتداخلة للمركبات. يمثل المعين الأخضر C. sinensis، وتشير السداسيات الزرقاء إلى المركبات المرشحة، والدوائر الصفراء إلى الأهداف المتداخلة، بينما يمثل المثلث الوردي CGN. وتشير الحواف إلى العلاقات المقابلة بين المركب والهدف أو المرض والهدف. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
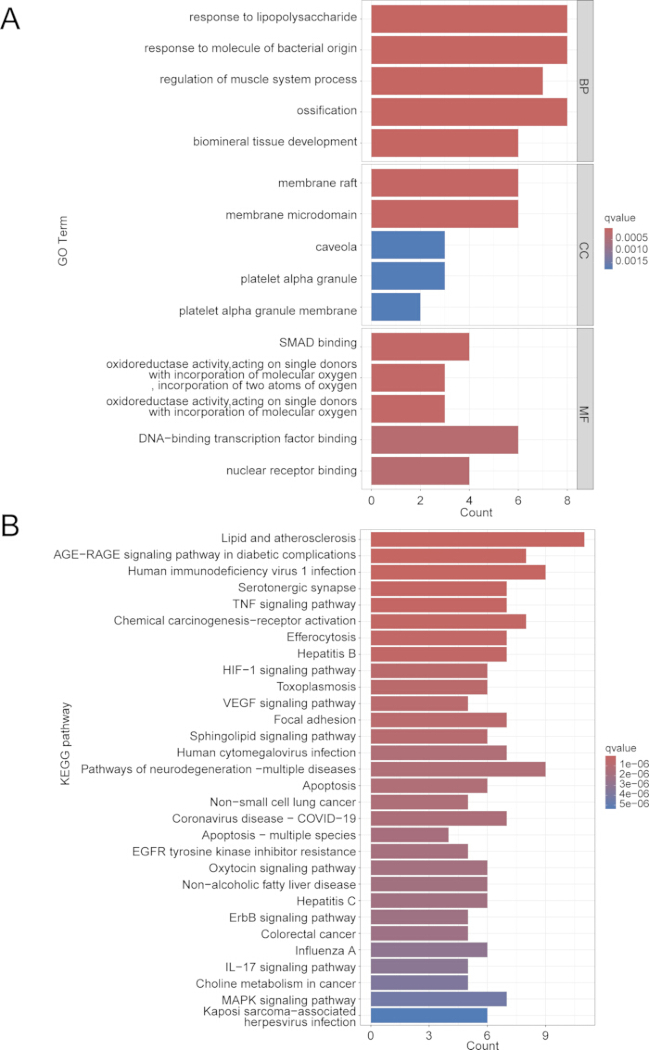
الشكل 2. تحليل الإثراء الوظيفي للأهداف المتداخلة. (A) تحليل إثراء GO لـ 23 هدفاً متداخلاً. تم تحديد أهم مصطلحات العمليات الحيوية (BP)، والمكونات الخلوية (CC)، والوظائف الجزيئية (MF). يشير طول الشريط إلى عدد الجينات؛ ويمثل تدرج الألوان قيمة q-value. (B) تحليل إثراء KEGG لـ 23 هدفاً متداخلاً. تم ترتيب المسارات حسب عدد الجينات والدلالة الإحصائية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
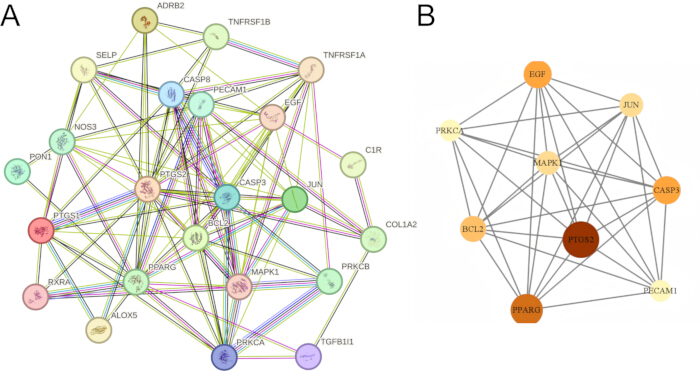
الشكل 3. شبكة التفاعل بين البروتينات وتحديد أولويات الأهداف المحورية للأهداف المتداخلة. (A) شبكة PPI تم إنشاؤها من 23 هدفاً متداخلاً باستخدام STRING مع عتبة درجة تفاعل >0.4. (B) تحديد أولويات أهم تسعة أهداف محورية من خلال تحليل طوبولوجيا الشبكة القائم على CytoNCA. أظهر PTGS2 مركزية شبكية بارزة وتم اختياره لتحليل الالتحام الجزيئي اللاحق. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
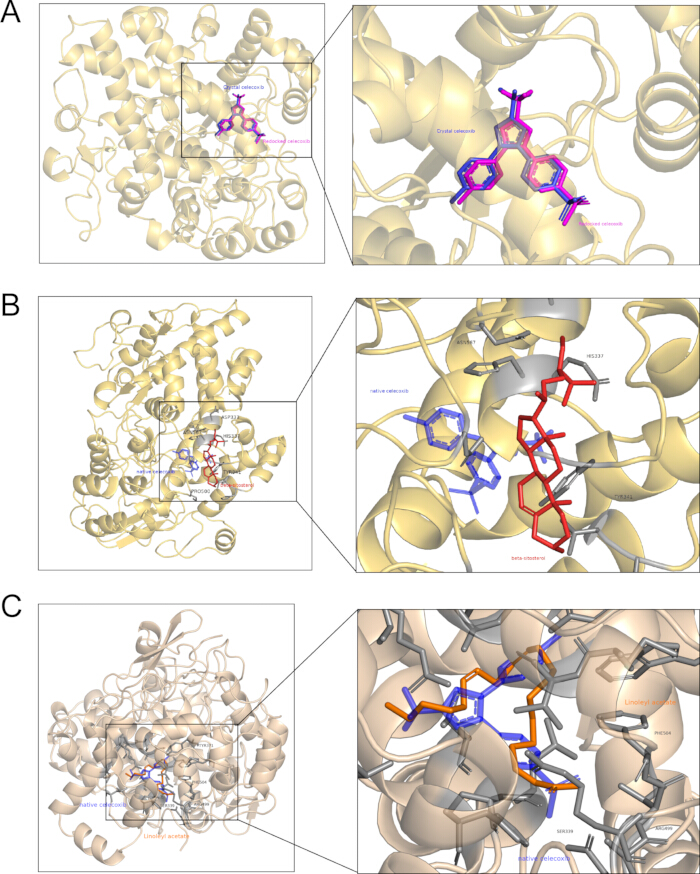
الشكل 4. الالتحام الجزيئي والتحقق من إعادة الالتحام لمركبات مرشحة مختارة مع COX-2. (A) تراكب لوضعية celecoxib البلورية والوضعية الأعلى تصنيفاً عند إعادة الالتحام في بنية murine COX-2 المرتبطة بـ celecoxib (PDB ID 3LN1). لقد أعادت عملية إعادة الالتحام إنتاج اتجاه الارتباط التجريبي. (B) وضعية الالتحام الأعلى تصنيفاً لـ β-sitosterol ضمن منطقة التحام COX-2 المحددة بواسطة celecoxib. تم تضمين وضعية celecoxib البلورية كمرجع مكاني. (C) وضعية الالتحام الأعلى تصنيفاً لـ linoleyl acetate ضمن نفس منطقة الالتحام. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
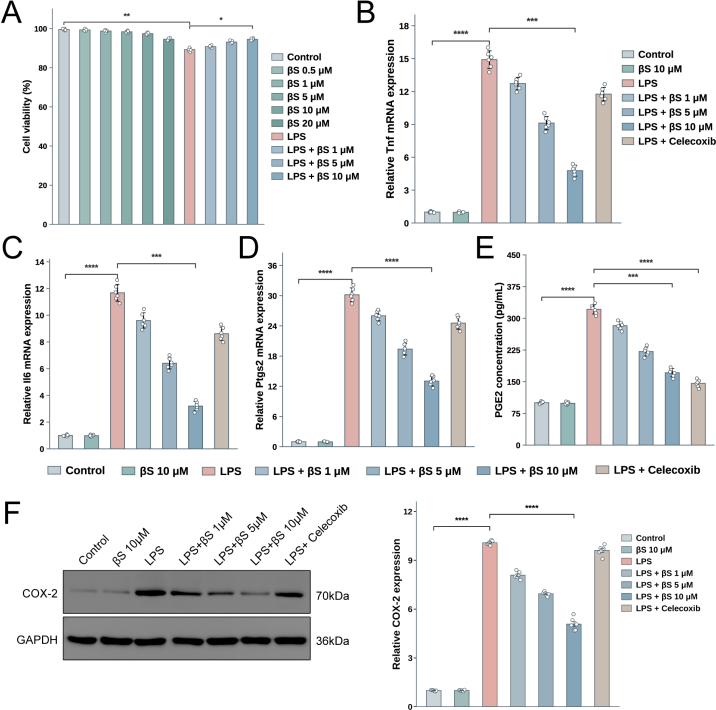
الشكل 5. مادة β-Sitosterol تخفف من التنشيط الالتهابي وإنتاج PGE2 الناجم عن LPS في خلايا الميزانجيوم HBZY-1. (A) تم قياس حيوية الخلايا باستخدام مقايسة Cell Counting Kit-8. عولجت الخلايا بـ β-sitosterol بتركيزات 0.5، أو 1، أو 5، أو 10، أو 20 µM لمدة 24 h. وفي المجموعات المحفزة بـ LPS، عولجت الخلايا مسبقاً بـ β-sitosterol بتركيزات 1، أو 5، أو 10 µM لمدة 2 h قبل التعرض لـ 1 µg/mL من LPS لمدة 24 h. عُبر عن حيوية الخلايا بالنسبة إلى مجموعة السيطرة (Control). (B–D) تحليل PCR الكمي في الوقت الحقيقي للتعبير عن mRNA لكل من Tnf (B)، وIl6 (C)، وPtgs2 (D). تم تطبيع التعبير الجيني بالنسبة لـ Gapdh وعُبر عنه بالنسبة إلى مجموعة السيطرة (Control). (E) تركيزات PGE2 في السوائل الطافية للمزرعة قيست بواسطة مقايسة الامتصاص المناعي المرتبط بالإنزيم (ELISA). تم إدراج Celecoxib كضابط موجب وظيفي لتثبيط إنتاج البروستاجلاندين المعتمد على COX-2. (F) صور ممثلة لطريقة western blot لبروتيني COX-2 وGAPDH في مجموعات العلاج المحددة. تُعرض البيانات كمتوسط ± SD من ست تجارب بيولوجية مستقلة، مع إظهار قيم المكررات البيولوجية الفردية. تم حساب متوسط قيم المكررات التقنية قبل التحليل. أُجريت المقارنات باستخدام اختبار ANOVA أحادي الاتجاه متبوعاً باختبار Tukey للمقارنات المتعددة. يُشار إلى الدلالة الإحصائية بالأقواس في اللوحات الفردية: *P < 0.05، و**P < 0.01، و***P < 0.001، و****P < 0.0001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
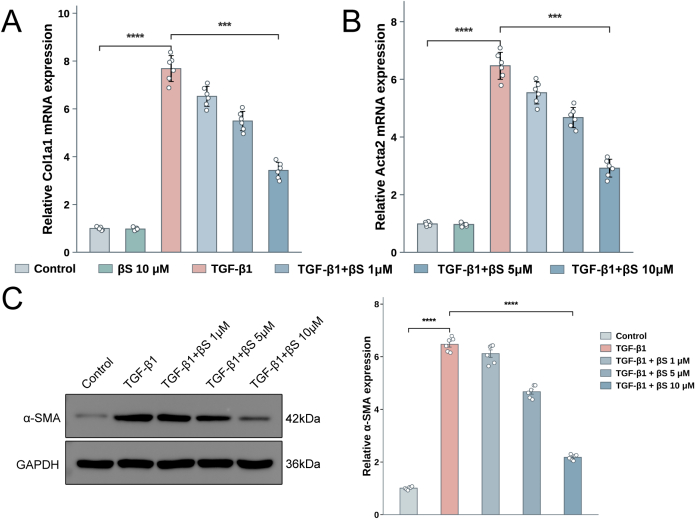
الشكل 6. يقلل β-Sitosterol من تعبير المؤشرات المحفزة للتليف الناتجة عن TGF-β1 في خلايا ميزانجيوم HBZY-1. (A–B) تحليل تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي لتعبير mRNA لكل من Col1a1 (A) و Acta2 (B). تم تطبيع التعبير الجيني بالنسبة لـ Gapdh وحُسبت القيمة بالنسبة لمجموعة الضبط (Control). (C) صور تمثيلية لتقنية لطخة ويسترن لبروتيني α-SMA و GAPDH في مجموعات العلاج المحددة. البيانات معروضة كمتوسط ± SD من ست تجارب بيولوجية مستقلة، مع إظهار قيم المكررات البيولوجية الفردية. تم حساب متوسط قيم المكررات التقنية قبل التحليل. أُجريت المقارنات باستخدام اختبار ANOVA أحادي الاتجاه متبوعاً باختبار Tukey للمقارنات المتعددة. يُشار إلى الدلالة الإحصائية بواسطة الأقواس في اللوحات الفردية: *P < 0.05، **P < 0.01، ***P < 0.001، و ****P < 0.0001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
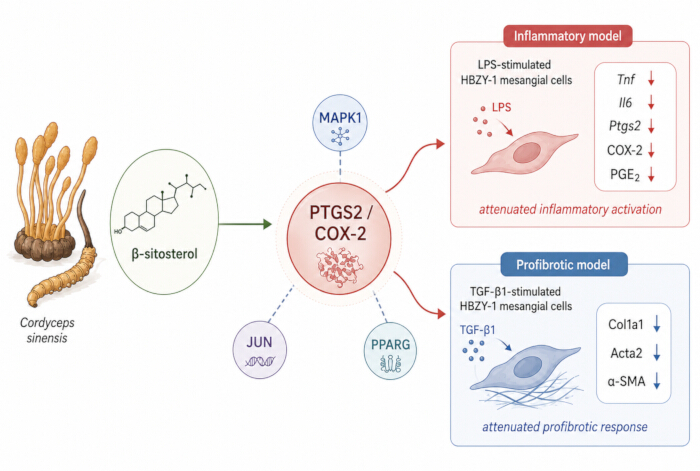
الشكل 7. التفسير المتكامل للاستجابات الالتهابية والمحفزة للتليف المرتبطة بـ β-sitosterol في خلايا HBZY-1. أعطت تحليلات الشبكة والالتحام الأولوية لـ PTGS2/COX-2 ضمن سياق أوسع شمل MAPK1 وJUN وPPARG. ارتبطت المعالجة بـ β-Sitosterol بانخفاض في تعبير Tnf وIl6 وPtgs2 المستحث بـ LPS، وفي وفرة بروتين COX-2، وإنتاج PGE2، بالإضافة إلى انخفاض في تعبير Col1a1 وActa2 وα-SMA المستحث بـ TGF-β1. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| لا. | الهدف المتداخل | المركب (أو المركبات) المرشحة المرتبطة بالهدف |
| 1 | PTGS1 | βسيتوستيرول؛ أسيتات اللينوليل؛ حمض الأراكيدونيك |
| 2 | PTGS2 | βسيتوستيرول؛ أسيتات اللينوليل؛ حمض الأراكيدونيك |
| 3 | CASP3 | β-سيتوستيرول؛ حمض الأراكيدونيك |
| 4 | CASP8 | βسييتوستيرول |
| 5 | BCL2 | βبيتا-سيتوستيرول |
| 6 | جون | βسيتوستيرول-بيتا |
| 7 | PON1 | βبيتا-سيتوستيرول |
| 8 | PRKCA | βسيتاستيرول- |
| 9 | TGFB1I1 | β-سيتوستيرول |
| 10 | ADRB2 | βسيتوستيرول- |
| 11 | RXRA | لينوليل أسيتات؛ حمض الأراشيدونيك |
| 12 | TNFRSF1A | حمض الأراكيدونيك |
| 13 | TNFRSF1B | حمض الأراكيدونيك |
| 14 | ALOX5 | حمض الأراكيدونيك |
| 15 | بروتين SELP | حمض الأراشيدونيك |
| 16 | C1R | حمض الأراكيدونيك |
| 17 | COL1A2 | حمض الأراكيدونيك |
| 18 | PPARG | حمض الأراشيدونيك |
| 19 | PRKCB | حمض الأراكيدونيك |
| 20 | NOS3 | حمض الأراكيدونيك |
| 21 | PECAM1 | حمض الأراكيدونيك |
| 22 | MAPK1 | حمض الأراكيدونيك |
| 23 | عامل نمو البشرة (EGF) | حمض الأراكيدونيك |
الجدول 1: الأهداف المتداخلة بين الأهداف المرتبطة بالمركبات والمستمدة من TCMSP والجينات المرتبطة بالتهاب كبيبات الكلى. تم استرجاع سجلات المركب والهدف من TCMSP، وإزالة التكرارات يدويًا، وتوحيدها وفقًا لرموز الجينات البشرية الرسمية باستخدام UniProt.
| اسم الجزيء | الوزن الجزيئي | ألوج ب (AlogP) | تجاوز الميزانية (%) | Caco-2 | الحاجز الدموي الدماغي | التعلم العميق | تحليل التجميع الفلوري من أجل التقييم (FASA) | بروتين HL |
| حمض الأراكيدونيك | 304.52 | 6.41 | 45.57 | 1.2 | 0.58 | 0.2 | 0.28 | 4.39 |
| أسيتات اللينوليل | 308.56 | 6.85 | 42.1 | 1.36 | 1.08 | 0.2 | 0.21 | 7.48 |
| βبيتا-سيتوستيرول | 414.79 | 8.08 | 36.91 | 1.32 | 0.99 | 0.75 | 0.23 | 5.36 |
| بيروكسي إرغوستيرول | 428.72 | 6.73 | 44.39 | 0.86 | 0.43 | 0.82 | 0.24 | 4.06 |
| سيريفيستيرول | 432.76 | 5.26 | 39.52 | 0.35 | -0.29 | 0.77 | 0.22 | 5.08 |
| بالميتات الكولستريول | 625.19 | 14.35 | 31.05 | 1.45 | 0.68 | 0.45 | 0.18 | 7.93 |
| كوليسترول (CLR) | 386.73 | 7.38 | 37.87 | 1.43 | 1.13 | 0.68 | 0.2 | 4.52 |
الجدول 2: المكونات المرشحة لـ C. sinensis المستخرجة من قاعدة بيانات TCMSP باستخدام معايير فحص التوافر الحيوي الفموي والتشابه الدوائي. تم الاحتفاظ بالمركبات التي تبلغ نسبة التوافر الحيوي الفموي لها 30% على الأقل والتشابه الدوائي 0.18 على الأقل. MW، الوزن الجزيئي؛ ALogP، معامل تقسيم الأوكتانول والماء المتوقع؛ OB، التوافر الحيوي الفموي؛ Caco-2، نفاذية Caco-2 المتوقعة؛ BBB، اختراق الحاجز الدموي الدماغي؛ DL، التشابه الدوائي؛ FASA، الجزء السالب من مساحة السطح المتاحة؛ HL، عمر النصف.
الجدول التكميلي 1. تسلسلات البادئات المستخدمة في تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (quantitative real-time PCR) في خلايا ميزانجيوم الكبيبة الكلوية للجرذ من سلالة HBZY-1. جميع التسلسلات معروضة في الاتجاه من 5′ إلى 3′.يرجى النقر هنا لتنزيل هذا الملف.
الملف التكميلي 1. صور المسح الكاملة لطريقة ويسترن بلوت (Western blot).يرجى النقر هنا لتحميل هذا الملف.
المناقشة
دمجت هذه الدراسة بين علم الصيدلة الشبكي، والالتحام الجزيئي الذي تم التحقق منه بواسطة ربيطة مرجعية، والتجارب على مستوى المركبات لفحص فرضية مرتبطة بـ PTGS2 مستمدة من المكونات المرشحة لنبات C. sinensis. استوفت سبعة مكونات معايير الفحص المحددة مسبقاً في قاعدة بيانات TCMSP، وتداخل 23 هدفاً مع مجموعة الجينات المرتبطة بالتهاب كبيبات الكلى. وأعطى تحليل التفاعل البروتيني الأولوية لتسعة أهداف مركزية، تم من بينها اختيار PTGS2 لعمليات الالتحام والتقييم التجريبي. وقد أعاد الالتحام العكسي لمركب celecoxib إنتاج وضعيته البلورية، بينما أظهر كل من β-sitosterol وlinoleyl acetate توافقاً متوقعاً متوسطاً مع منطقة الالتحام لـ COX-2. وفي خلايا الميزانجيوم من نوع HBZY-1، خفّض β-sitosterol من التعبير الجيني للالتهاب الناجم عن LPS، ووفرة COX-2، وإنتاج PGE2، كما خفّض من التعبير عن المؤشرات المسببة للتليف الناجمة عن TGF-β1. تربط هذه النتائج بين تحديد الأولويات حاسوبياً والأنماط الظاهرية الخلوية، إلا أنها تدعم وجود علاقة تنظيمية مرشحة بدلاً من آلية علاجية محددة.
وضعت نتائج الإثراء الأهداف المتداخلة ضمن عمليات بيولوجية مرتبطة بالتحفيز الالتهابي، والإجهاد الخلوي، وتنظيم الدهون، والوظيفة الوعائية، وإعادة تشكيل الأنسجة. وكان إثراء الاستجابات لـ lipopolysaccharide والمنتجات البكتيرية متسقاً مع النموذج الالتهابي المستخدم للتحقق التجريبي. كما وفرت المسارات المرتبطة بـ TNF وIL-17 وAGE-RAGE وHIF-1 سياقاً وظيفياً منطقياً لالتهاب الكبيبات وإعادة التشكيل غير التكيفية6,17,18,19. ومع ذلك، فإن إثراء المسارات يعكس تركيزاً إحصائياً للجينات الموصوفة ولا يثبت تنشيط أو تثبيط المسار بواسطة β-sitosterol12. لذا، يجب تفسير التوصيف البارز للدهون وتصلب الشرايين على أنه بيولوجيا التهابية وموت خلوي ووعائية مشتركة، وليس كدليل على أن تصلب الشرايين يمثل آلية المرض الرئيسية في CGN. وبالمثل، تم استخدام سجلات التوافر الحيوي الفموي، والتشابه الدوائي، وسجلات الأهداف المستندة إلى TCMSP لتحديد أولويات المرشحين.
برز PTGS2 كعقدة ذات صلة لأنه كان موجوداً في تقاطع المركب والمرض، وأظهر مركزية عالية في الشبكة، وكان مرتبطاً تجريبياً بتغيرات في نسخ Ptgs2، ووفرة بروتين COX-2، وإنتاج PGE2. هذا التوافق عبر المستويين الحسابي والخلوي يعزز المبررات لفحص الاستجابة المرتبطة بـ PTGS2. ومع ذلك، فإن هذا لا يعني أن PTGS2 ممرض بشكل موحد في الكلى. تساهم البروستانويدات المشتقة من COX في تدفق الدم الكلوي، والتعامل مع الملح، والتوازن التكيفي، وقد تمارس تأثيرات وقائية أو ضارة وفقاً لنوع الخلية، وتوزيع المستقبلات، ومرحلة المرض، والتركيز المحلي20,21. في التهاب الكلية التجريبي، قلل celecoxib من الناتج المرتبط بـ PGE2، بينما أثر PGE2 نفسه على تعبير مستقبل البروستاغلاندين في الخلايا الميزانجيالية22. وتوضح هذه الملاحظات أن العواقب البيولوجية لـ COX-2 وPGE2 تمتد إلى ما هو أبعد من مسار التهابي خطي بسيط20,23. وتساعد المقارنة مع celecoxib في التمييز بين تعبير الهدف ووظيفة الإنزيم. أحدث celecoxib أوضح انخفاض في PGE2، بما يتماشى مع دوره كمثبط وظيفي لـ COX-2، ولكنه أحدث تأثيراً أكثر محدودية على تعبير Ptgs2 ووفرة بروتين COX-222. أظهر β-Sitosterol نمطاً أوسع شمل انخفاضاً في Tnf وIl6 وPtgs2 وCOX-2 وPGE2. لا يشير هذا الاختلاف إلى قوة تثبيط فائقة لـ COX-2، بل يشير بدلاً من ذلك إلى أن β-sitosterol قد يغير الحالة الالتهابية التي يتم فيها تحفيز PTGS2، بينما يحد celecoxib في المقام الأول من تخليق البروستاغلاندين من خلال تثبيط النشاط التحفيزي. وسيتطلب الأمر إجراء مقايسات إنزيمية مباشرة، ودراسات لارتباط الهدف، واضطراب PTGS2 لتحديد ما إذا كان β-sitosterol يتفاعل وظيفياً أيضاً مع COX-2.
تشير نتائج الشبكة أيضًا إلى أنه لا ينبغي تفسير PTGS2 كعقدة جزيئية معزولة. فقد تم إعطاء أولوية مشتركة لكل من MAPK1 و JUN و PPARG في شبكة التفاعل البروتيني، مما يضع تخليق البروستانويد ضمن سياق إشاري ونسخي أوسع. وفي الخلايا الميزانجيّة الكلوية، أدى سفينغوزين 1-فوسفات إلى زيادة تعبير COX-2 وتكوين PGE2 من خلال إشارات p42/p44 MAPK المعتمدة على مستقبل S1P 2، مما يوفر دليلًا مباشرًا على أن نشاط MAPK يمكن أن يقع في مرحلة تسبق استجابة COX-2/PGE2 في هذا النوع من الخلايا24. وبما أن JUN يمثل مكونًا رئيسيًا في معقد عامل النسخ AP-1، فقد يوفر AP-1 واجهة ربط بين تنشيط MAPK ونسخ PTGS2. وتماشيًا مع هذا الاحتمال، قام 15-deoxy-Δ12,14-prostaglandin J2 بتثبيط تعبير COX-2 المستحث بواسطة IL-1β جنبًا إلى جنب مع نشاط AP-1 في الخلايا الميزانجيّة المستنبتة25. وفي نماذج خلوية غير كلوية، قلل β-sitosterol من تنشيط ERK و p38، وإشارات NF-κB، وتعبير COX-2، وإنتاج السيتوكينات الالتهابية بعد التعرض لـ LPS14,15. وتوفر هذه الملاحظات سياقًا منطقيًا للانخفاضات المنسقة في Tnf و Il6 و Ptgs2 و COX-2 و PGE2 التي لوحظت في الدراسة الحالية. ومع ذلك، فقد أجريت دراسات β-sitosterol المذكورة في خلايا دبقية صغيرة أو خلايا بطانية بدلاً من الخلايا الميزانجيّة الكلوية، ولم يتم قياس فسفرة MAPK1 ونشاط JUN هنا. وبناءً على ذلك، فإن النتائج الحالية لا تثبت وجود آلية لتنظيم PTGS2 بواسطة β-sitosterol تعتمد على MAPK1 أو JUN. وقد يتقاطع PPARG مع الشبكة المتمحورة حول PTGS2 من خلال التنظيم النسخي الحساس للدهون وتعديل النمط الظاهري للخلايا الميزانجيّة المحفز للتليف، بدلاً من كونه مجرد مؤثر خطي لاحق لـ PTGS2. ففي الخلايا الميزانجيّة الكبيبية، ثبطت ربيطات PPARγ الطبيعية والاصطناعية تعبير الفيبرونكتين المستحث بواسطة TGF-β1، بينما أظهر عمل منفصل أن منشطات PPARγ قللت من تنشيط الخلايا الميزانجيّة المستحث بواسطة TGF-β، وتعبير α-SMA، وتراكم كولاجين IV من خلال تخفيف إشارات PKA و CREB26,27. ووضعت أعمال أحدث في الفئران المصابة بالسكري والخلايا الميزانجيّة الكبيبية المحفزة بالجلوكوز العالي كلاً من NF-κB/COX-2 و PPARγ/UCP2 ضمن محاور تنظيمية متوازية مرتبطة بالالتهاب والتليف الكلوي، مما يدعم التقارب الوظيفي المحتمل دون إثبات اقتران مباشر بين PTGS2 و PPARG28. وتوفر هذه النتائج سياقًا منطقيًا بيولوجيًا للانخفاضات في Col1a1 و Acta2 و α-SMA التي لوحظت في نموذج TGF-β1 الحالي. ومع ذلك، لم يتم تقييم تعبير PPARG ونشاطه النسخي وارتباط الربيطة به. ولذلك، لا يمكن للبيانات الحالية عزو الاستجابة المحفزة للتليف الملحوظة إلى تنشيط PPARG أو تحديد مسار إشاري تتابعي من MAPK1-PTGS2-PPARG. ومن المهم الإشارة إلى أن MAPK1 و PPARG تم إعطاؤهما الأولوية على مستوى شبكة المركب-المرض المتكاملة، ولا ينبغي تفسيرهما كأهداف مباشرة لـ β-sitosterol بناءً على التحليل الحالي.
يجب تفسير تحليل الإرساء (docking analysis) ضمن نفس الحدود الإثباتية. وقد أشارت قيمة RMSD لإعادة الإرساء البالغة 0.876 Å إلى أن بروتوكول الإرساء المختار يمكنه إعادة إنتاج توجيه celecoxib المعروف في بنية 3LN1. كما دعمت التقاربات المتوقعة لـ β-sitosterol وlinoleyl acetate، والتي كانت أقل ملاءمة بشكل ملحوظ مقارنة بـ celecoxib، الاستيعاب المكاني ضمن المنطقة المحددة مسبقاً، ولكنها لم تدعم قوة ارتباط أو عملاً فارماكولوجياً مكافئاً29,30. إن الفرق البالغ 0.3 kcal/mol بين linoleyl acetate وβ-sitosterol صغير جداً بحيث لا يبرر تصنيفاً بيولوجياً بشكل مستقل. وقد تم اختيار β-Sitosterol للاختبارات اللاحقة لأن ارتباطه الشبكي كان مصحوباً بأدبيات تجريبية أوسع ذات صلة بالالتهاب والتليف14,15,16. وأفادت دراسات سابقة بحدوث انخفاضات في TNF-α وIL-6 وCOX-2 في الخلايا الدبقية الصغيرة والخلايا البطانية المعرضة لـ LPS، إلى جانب تغيرات في إشارات MAPK وNF-κB14,15. أما حمض arachidonic فيتطلب تفسيراً مختلفاً لكونه ركيزة داخليّة لـ COX21. ولا يشير وجوده في الشبكة المشتقة من TCMSP إلى عمل تثبيطي مضاد للالتهابات، بل يوضح أن علاقات المركبات بالأهداف القائمة على قواعد البيانات لا تحدد الاتجاهية. وتتوافق الانخفاضات المرتبطة بالتركيز في المؤشرات الالتهابية الملحوظة في خلايا HBZY-1 مع هذه النتائج الخلوية السابقة، مع توسيع نطاق الأدلة لتشمل سياق الميزانجيوم الكبيبي (glomerular mesangial context)14,15. وقد تناول نموذج TGF-β1 جانباً منفصلاً من عملية المرض31. حيث خفّض β-Sitosterol من نسخ Col1a1 وActa2 وقلل من وفرة α-SMA بعد تحفيزه بـ TGF-β1. وبالمثل، وجدت أعمال سابقة في الخلايا الظهارية السنخية البشرية أن β-sitosterol قلل من تعبير الكولاجين والفبرونكتين وα-SMA المستحث بـ TGF-β1، رغم أن تلك الدراسة شملت نسيجاً وعملية خلوية مختلفة16. وبناءً على ذلك، تدعم النتائج الحالية وجود نشاط ضد النمط الظاهري المحفز للتليف في خلايا الميزانجيوم، ولكنها لا تثبت تثبيط مستقبل TGF-β محدد أو آلية تعتمد على SMAD31.
تحدد عدة قيود نطاق التفسير؛ فقد تم إنشاء مجموعة جينات المرض باستخدام المصطلح العام التهاب كبيبات الكلى (glomerulonephritis)، وهي ليست مقتصرة على نمط سريري أو نسيجي واحد من التهاب كبيبات الكلى المزمن (CGN). وقد اعتمد التحليل الحسابي على توصيفات بشرية، بينما استخدم الالتحام الجزيئي بنية COX-2 الفأرية، وأُجريت التجارب في خلايا HBZY-1 من الجرذان. ورغم أن علاقات التناظر تدعم المقارنة، إلا أن الاختلافات المعتمدة على النوع في التنظيم والتعرف على الربيطة تظل محتملة. كما لا يمكن لخط خلوي واحد مخلّد من الخلايا الميزانجيالية أن يمثل التفاعلات بين الخلايا الميزانجيالية، والخلايا القدمية، والخلايا البطانية، والخلايا المناعية المرتشحة، والحيز الأنبوبي الخلالي. ولم تقيم الدراسة أيضاً الارتباط المباشر، أو النشاط الإنزيمي لـ COX-2، أو الاعتماد على PTGS2، أو الخلايا الكلوية البشرية الأولية، أو الفعالية in vivo، أو الحركية الدوائية، أو التعرض الكلوي. وأخيراً، فإن اختبار تحضير محدد من β-sitosterol يعالج التضارب السابق بين المكونات المتوقعة ومستخلص غير موصف، ولكنه لا يثبت أن β-sitosterol هو المسؤول عن تأثيرات نبات C. sinensis الكاملة أو أن المكونات الأخرى غير نشطة.
وبناءً على ذلك، تدعم نتائج الشبكة والالتحام والنتائج القائمة على الخلايا كون β-sitosterol مرشحاً نموذجياً يرتبط بانخفاض التنشيط الالتهابي والمحفز للتليف في خلايا HBZY-1. وتتفق هذه النتائج مع تعديل الاستجابة المرتبطة بـ PTGS2/COX-2/PGE2، ولكنها لا تثبت الارتباط المباشر بـ COX-2، أو السببية المعتمدة على PTGS2، أو الفعالية العلاجية في CGN. لذا، هناك حاجة إلى مزيد من الدراسات حول ارتباط الهدف، والاضطراب الجيني، والخلايا الأولية، والدراسات in vivo (الشكل 7).
الإفصاحات
يصرح المؤلفون بأنه لا توجد لديهم أي تضاربات في المصالح. تم استخدام أدوات تعتمد على الذكاء الاصطناعي (ChatGPT, OpenAI) للمساعدة في التحرير اللغوي والتصميم الأولي للأشكال التوضيحية. كما استُخدم الذكاء الاصطناعي التوليدي للمساعدة في إعداد المسودات الرسومية الأولية للشكلين 1A و 7، والتي قام المؤلفون لاحقاً بمراجعتها وتنقيحها لضمان اتساقها مع الطرق والنتائج المذكورة. وقد تم تقييم جميع المخرجات المدعومة بالذكاء الاصطناعي تقييماً نقدياً واعتمادها من قبل المؤلفين. كما تحقق المؤلفون من المحتوى النهائي للأشكال وتحملوا المسؤولية الكاملة عن سلامة المخطوطة ودقتها.
شكر وتقدير
تم دعم هذه الدراسة من قبل تخصص أمراض الكلى المتكامل بين الطب الصيني التقليدي والطب الغربي (ZYTSZK2-3) ودراسة استراتيجية تدخل الطب الصيني التقليدي في مرض الكلى المزمن من منظور إدارة الأمراض المزمنة (202240169).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| إيثانول مطلق | Sigma-Aldrich/Merck | E7023 | إيثانول بتركيز 200 proof، غير ممسوخ، بدرجة نقاء مناسبة للبيولوجيا الجزيئية؛ مذيب للمحلول المخزون من β-sitosterol. |
| AutoDock Vina | Scripps Research | Version 1.1.2 | محاكاة الالتحام الجزيئي |
| كابينة السلامة البيولوجية | Thermo Fisher Scientific | 1300 Series A2 | عمليات زراعة الخلايا المعقمة |
| Celecoxib | MedChemExpress | HY-14398 | مثبط انتقائي لـ COX-2 مستخدم كضابط موجب؛ محلول مخزون بتركيز 10 mM في DMSO. |
| Cell Counting Kit-8 | Dojindo Molecular Technologies, Inc. | CK04 | مقايسة WST-8 اللونية لحيوية الخلايا؛ يتم قياس الامتصاص عند 450 nm. |
| نظام تصوير باللمعان الكيميائي | Bio-Rad Laboratories | ChemiDoc MP | الحصول على صور لطخة ويسترن |
| حزمة clusterProfiler لـ R | Bioconductor | Version 4.10.0 | تحليل إثراء GO و KEGG |
| حاضنة زراعة خلايا CO2 | Thermo Fisher Scientific | Forma Series II 3111 | تحضين الخلايا عند 37 °C و 5% CO2 |
| COX-2 (D5H5) Rabbit Monoclonal Antibody | Cell Signaling Technology | 12282 | تم التحقق منه في لطخة ويسترن للإنسان والفأر والجرذ لـ COX-2؛ يستخدم بنسبة 1:1,000. |
| إضافة CytoNCA | Cytoscape App Store | Version 2.1.6 | التحليل الطوبولوجي للأهداف المركزية (Hub targets) |
| برنامج Cytoscape | Cytoscape Consortium | Version 3.8.0 | تصوير وتحليل الشبكات |
| ثنائي ميثيل سلفوكسيد | Sigma-Aldrich/Merck | D2650 | كاشف بيولوجي مفلتر ومعقم، ≥99.7%؛ مذيب للمحلول المخزون من celecoxib. |
| قاعدة بيانات DisGeNET | Integrative Biomedical Informatics Group | Not applicable | استرجاع الجينات المرتبطة بمرض التهاب كبيبات الكلى |
| وسط Dulbecco المعدل (DMEM) | Gibco/Thermo Fisher Scientific | C11995500BT | وسط أساسي لزراعة خلايا HBZY-1 |
| ركيزة اللمعان الكيميائي المعزز | Beyotime Biotechnology | P0018S | تصوير حزم لطخة ويسترن |
| مصل جنين البقر | Gibco/Thermo Fisher Scientific | 10099-141C | مكمل مصل لزراعة الخلايا |
| GAPDH (D16H11) Rabbit Monoclonal Antibody | Cell Signaling Technology | 5174 | ضابط تحميل لطخة ويسترن؛ يتفاعل مع GAPDH في الإنسان والفأر والجرذ؛ يستخدم بنسبة 1:5,000 بعد التحسين المخبري. |
| قاعدة بيانات GeneCards | Weizmann Institute of Science | NA | استرجاع الجينات المرتبطة بالتهاب كبيبات الكلى |
| GraphPad Prism | GraphPad Software | Version 9.0.0.121 | التحليل الإحصائي للبيانات التجريبية في المختبر (in vitro) |
| HRP-conjugated goat anti-rabbit IgG | Proteintech Group | SA00001-2 | جسم مضاد ثانوي للأجسام المضادة الأولية من الأرانب |
| برنامج ImageJ | National Institutes of Health | Version 1.54 | التحليل الكثافي لطخة ويسترن |
| مجهر تباين طوري مقلوب | Olympus | CKX53 | مراقبة مورفولوجيا الخلايا |
| حزمة org.Hs.eg.db لـ R | Bioconductor | Version 3.18.0 | توصيف الجينات البشرية لتحليل الإثراء |
| محلول بنسيلين-ستربتومايسين | Gibco/Thermo Fisher Scientific | 15140122 | مكمل مضاد حيوي لزراعة الخلايا |
| PGE2 Parameter Assay Kit | R&D Systems, a Bio-Techne brand | KGE004B | مقايسة ELISA تنافسية لعدة أنواع لسوائل زراعة الخلايا العلوية؛ نطاق المقايسة 39–2,500 pg/mL؛ كشف لوني عند 450 nm. |
| قاعدة بيانات PharmGKB | Pharmacogenomics Knowledgebase | NA | استرجاع الأهداف المرتبطة بالأمراض |
| قاعدة بيانات PubChem | National Center for Biotechnology Information | NA | استرجاع تراكيب الربيطات (ligands) |
| غشاء PVDF | Millipore/Merck | IPVH00010 | غشاء نقل البروتين للطخة ويسترن |
| نظام PyMOL للرسومات الجزيئية | Schrödinger, LLC | Version 2.6.2 | تصوير وضعية الالتحام |
| برنامج R | R Foundation for Statistical Computing | Version 4.3.2 | تحليل تقاطع الأهداف والإثراء |
| خط خلايا ميزانجيوم كبيبي من الجرذ (HBZY-1) | Procell Life Science & Technology Co., Ltd. | CL-0117 | نموذج تحقق من الخلايا الميزانجية في المختبر (in vitro) |
| RCSB Protein Data Bank | Research Collaboratory for Structural Bioinformatics | PDB ID: 3LN1 | استرجاع البنية البلورية لـ PTGS2/COX2 |
| بروتين TGF-β1 البشري المأشوب | PeproTech, a Thermo Fisher Scientific brand | 100-21-10UG | TGF-β1 بشري مأشوب مشتق من HEK293؛ تحفيز تليفي بتركيز 10 ng/mL. |
| نظام الرحلان الكهربائي SDS-PAGE | Bio-Rad Laboratories | Mini-PROTEAN Tetra | فصل البروتينات بواسطة SDS-PAGE |
| قاعدة بيانات STRING | ELIXIR/STRING Consortium | Version 12.0 | بناء شبكة التفاعلات بين البروتينات |
| قاعدة بيانات TCMSP | Traditional Chinese Medicine Systems Pharmacology Database | NA | فحص المركبات المرشحة من Cordyceps sinensis |
| قاعدة بيانات الأهداف العلاجية | Innovative Drug Research and Bioinformatics Group | NA | استرجاع الأهداف العلاجية |
| جسم مضاد أولي لـ α-SMA | Proteintech Group | 14395-1-AP | كشف تعبير بروتين α-SMA |
| β-Sitosterol (نقاء >98%) | MedChemExpress | HY-N0171A | CAS 83-46-5؛ مركب محدد مستخدم لمعالجة الخلايا؛ محلول مخزون بتركيز 10 mM في إيثانول مطلق. |
المراجع
- Kidney Disease: Improving Global Outcomes Glomerular Diseases Work G. KDIGO 2021 Clinical Practice Guideline for the Management of Glomerular Diseases. Kidney Int. 2021;100(4S):S1–S276.
- Roccatello D. et al. From inflammation to renal fibrosis: A one-way road in autoimmunity? Autoimmun Rev. 2024;23(4):103466.
- Reiss AB. et al. Fibrosis in Chronic Kidney Disease: Pathophysiology and Therapeutic Targets. J Clin Med. 2024;13(7).
- Kant S, Kronbichler A, Geetha D. Principles of Immunosuppression in the Management of Kidney Disease: Core Curriculum 2022. Am J Kidney Dis. 2022;80(3):393–405.
- El Karoui K, Fervenza FC, De Vriese AS. Treatment of IgA Nephropathy: A Rapidly Evolving Field. J Am Soc Nephrol. 2024;35(1):103–16.
- Stenvinkel P. et al. Chronic Inflammation in Chronic Kidney Disease Progression: Role of Nrf2. Kidney Int Rep. 2021;6(7):1775–87.
- Tanaka S, Portilla D, Okusa MD. Role of perivascular cells in kidney homeostasis, inflammation, repair and fibrosis. Nat Rev Nephrol. 2023;19(11):721–32.
- Liu W. et al. Mechanism of Cordyceps sinensis and its Extracts in the Treatment of Diabetic Kidney Disease: A Review. Front Pharmacol. 2022;13:881835.
- Yan G. et al. The effects of Ophiocordyceps sinensis combined with ACEI/ARB on diabetic kidney disease: A systematic review and meta-analysis. Phytomedicine. 2023;108:154531.
- Li S, Pang W, Wang Y, Zhang Y. Cordyceps sinensis extract protects against acute kidney injury by inhibiting perforin expression in NK cells via the STING/IRF3 pathway. Aging (Albany NY). 2024;16(7):5887–904.
- Zhang Y, Li K, Zhang C, Liao H, Li R. Research Progress of Cordyceps sinensis and Its Fermented Mycelium Products on Ameliorating Renal Fibrosis by Reducing Epithelial-to-Mesenchymal Transition. J Inflamm Res. 2023;16:2817–30.
- Zhao L. et al. Network pharmacology, a promising approach to reveal the pharmacology mechanism of Chinese medicine formula. J Ethnopharmacol. 2023;309:116306.
- Ru J. et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Bi Y. et al. beta-Sitosterol Suppresses LPS-Induced Cytokine Production in Human Umbilical Vein Endothelial Cells via MAPKs and NF-kappaB Signaling Pathway. Evid Based Complement Alternat Med. 2023;2023:9241090.
- Sun Y, Gao L, Hou W, Wu J. beta-Sitosterol Alleviates Inflammatory Response via Inhibiting the Activation of ERK/p38 and NF-kappaB Pathways in LPS-Exposed BV2 Cells. Biomed Res Int. 2020;2020:7532306.
- Park YJ. et al. Effects of beta-Sitosterol from Corn Silk on TGF-beta1-Induced Epithelial-Mesenchymal Transition in Lung Alveolar Epithelial Cells. J Agric Food Chem. 2019;67(35):9789–95.
- Li DD. et al. RTEC-intrinsic IL-17-driven inflammatory circuit amplifies antibody-induced glomerulonephritis and is constrained by Regnase-1. JCI Insight. 2021;6(13).
- Martin-Carro B. et al. Role of Klotho and AGE/RAGE-Wnt/beta-Catenin Signalling Pathway on the Development of Cardiac and Renal Fibrosis in Diabetes. Int J Mol Sci. 2023;24(6).
- Naas S, Schiffer M, Schodel J. Hypoxia and renal fibrosis. Am J Physiol Cell Physiol. 2023;325(4):C999–C1016.
- Harris RC, Breyer MD. Physiological regulation of cyclooxygenase-2 in the kidney. Am J Physiol Renal Physiol. 2001;281(1):F1–11.
- Calder PC. Eicosanoids. Essays Biochem. 2020;64(3):423–41.
- Waldner C, Heise G, Schror K, Heering P. COX-2 inhibition and prostaglandin receptors in experimental nephritis. Eur J Clin Invest. 2003;33(11):969–75.
- Pan Y. et al. Myeloid cyclooxygenase-2/prostaglandin E2/E-type prostanoid receptor 4 promotes transcription factor MafB-dependent inflammatory resolution in acute kidney injury. Kidney Int. 2022;101(1):79–91.
- Volzke A, Koch A, Meyer Zu Heringdorf D, Huwiler A, Pfeilschifter J. Sphingosine 1-phosphate (S1P) induces COX-2 expression and PGE2 formation via S1P receptor 2 in renal mesangial cells. Biochim Biophys Acta. 2014;1841(1):11–21.
- Sawano H. et al. 15-Deoxy-Delta12,14-prostaglandin J2 inhibits IL-1beta-induced cyclooxygenase-2 expression in mesangial cells. Kidney Int. 2002;61(6):1957–67.
- Guo B. et al. Peroxisome proliferator-activated receptor-gamma ligands inhibit TGF-beta 1-induced fibronectin expression in glomerular mesangial cells. Diabetes. 2004;53(1):200–8.
- Zou R. et al. PPARgamma agonists inhibit TGF-beta-PKA signaling in glomerulosclerosis. Acta Pharmacol Sin. 2010;31(1):43–50.
- Wei J. et al. PP2 Ameliorates Renal Fibrosis by Regulating the NF-kappaB/COX-2 and PPARgamma/UCP2 Pathway in Diabetic Mice. Oxid Med Cell Longev. 2021;2021:7394344.
- Yang C, Chen EA, Zhang Y. Protein-Ligand Docking in the Machine-Learning Era. Molecules. 2022;27(14).
- Quiroga R, Villarreal MA. Developing Generalizable Scoring Functions for Molecular Docking: Challenges and Perspectives. Curr Med Chem. 2025;32(28):5960–72.
- Li J. et al. TGF-beta/Smad signaling in chronic kidney disease: Exploring post-translational regulatory perspectives (Review). Mol Med Rep. 2024;30(2).