باستخدام تحليلات ترانسكريبتوميا الكتلة (bulk)، والخلايا المفردة (single-cell)، والترانسكريبتوميا المكانية (spatial transcriptomic)، جنبًا إلى جنب مع نمذجة البقاء القائمة على التعلم الآلي والتحقق التجريبي، يرشح هذا البحث جين PPARG كجين إنذاري مرشح مرتبط بالشيخوخة في الساركوما العظمية، ويربط انخفاض تعبيره بسوء معدلات البقاء في مجموعة TARGET-OS وبالسمات الوعائية والبيئية الدقيقة.
مقالة بحثية
تسمّي التحليلات التكاملية لترانسكريبتوم الخلايا الكلية والمنفردة والمكانية جين PPARG كجين تنبؤي مرشح مرتبط بالهرم في الساركوما العظمية
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
لا يزال الساركوما العظمية (Osteosarcoma) يشكل تحدياً في حالات المرض النقيل أو المتكرر أو المقاوم للعلاج. هدفت هذه الدراسة إلى تحديد الجينات الإنذارية المرتبطة بالشيخوخة وتوصيف سياقاتها المكانية. أُجري تحليل التعبير التفاضلي المزدوج في مجموعة GSE99671 باستخدام DESeq2، متبوعاً بتقاطع مع مجموعة جينات الشيخوخة CellAge. تم الحصول على البيانات الترانسكريبتومية من مجموعة TARGET-OS من UCSC Xena. قُيمت الجينات المرشحة باستخدام انحدار Cox أحادي المتغير، وتحليل Kaplan-Meier، وتحليل خصائص تشغيل المستقبل المعتمد على الوقت، وانحدار LASSO Cox، وتحليل LASSO المتكرر، ونمذجة الغابة العشوائية للبقاء، مع دمج المتغيرات السريرية المرافقة في نماذج Cox المعدلة. ولتوصيف ذلك، استُخدم الإثراء الوظيفي، وتحليل البيئة الدقيقة المناعية، والترانسكريبتوميات أحادية الخلية، والترانسكريبتوميات المكانية SP_BS3، والتحقق من التعبير في GSE36001، والتحقق بواسطة qRT-PCR وWestern blot في خلايا الساركوما العظمية 143B وخلايا بانية العظم. في GSE99671، تم التعبير عن 2,248 جيناً بشكل تفاضلي مع قيمة P معدلة < 0.05، وأدى تقاطعها مع جينات CellAge البالغ عددها 866 جيناً إلى الحصول على 105 جينات معبر عنها تفاضلياً ومرتبطة بالشيخوخة. وفي TARGET-OS، ارتبط انخفاض تعبير PPARG بزيادة خطر الوفاة (HR أحادي المتغير = 0.603، 95% CI = 0.454–0.802، P = 0.000494؛ HR المعدل = 0.224، 95% CI = 0.085–0.589، P = 0.00241). أدى إضافة PPARG إلى النموذج السريري إلى زيادة مؤشر C-index من 0.707 إلى 0.829. كان تعبير PPARG منخفضاً في كل من GSE99671 وGSE36001، وأكد qRT-PCR وWestern blotting انخفاض تعبير mRNA وبروتين PPARG في خلايا الساركوما العظمية 143B مقارنة بخلايا بانية العظم. حدد التحليل أحادي الخلية موقع PPARG في الخلايا البطانية، والبريسيتات (pericytes)، والبلعميات/الوحيدات، والخلايا السدوية المرتبطة بالأورام. أظهر تحليل الترانسكريبتوميات المكانية ارتباطات إيجابية ضعيفة ولكنها ذات دلالة إحصائية بين تعبير PPARG ودرجات الشيخوخة في CellAge، والدرجات المرتبطة بالخلايا البطانية، والدرجات المرتبطة بالبريسيتات. ترشح هذه النتائج PPARG كعلامة بيولوجية إنذارية مشتقة من CellAge مرتبطة ببقاء غير مواتٍ وخصائص البيئة الدقيقة الوعائية في الساركوما العظمية، وتدعم البحث في صلتها المحتملة بتصنيف المخاطر والبيئة الدقيقة للورم المرتبطة بالشيخوخة. وفرت GSE36001 تحققاً خارجياً من التعبير فقط؛ ولم يتم إجراء تحقق مستقل من البقاء.
المقدمة
يعد الساركوما العظمية (Osteosarcoma) الورم العظمي الخبيث الأولي الأكثر شيوعاً لدى الأطفال والمراهقين والبالغين الصغار1. وعلى الرغم من أن العلاج الكيميائي متعدد العوامل والمدمج مع الجراحة قد أدى إلى تحسين النتائج في الحالات الموضعية2,3، إلا أن المرضى الذين يعانون من ساركوما عظمية نقيلية أو متكررة أو مقاومة للعلاج لا يزالون يعانون من ضعف في معدلات البقاء على قيد الحياة على المدى الطويل3,4. وتشير الأدلة الناشئة إلى أن إعادة تشكيل فوق الجينية الناجمة عن الإجهاد التأكسدي يمكن أن تسهل التكيف النقيلي وتطور الورم، مما يسلط الضوء على اللدونة الجزيئية المعقدة التي تكمن وراء الأنماط الظاهرية السرطانية العدوانية5. ولا تزال المؤشرات الحيوية القوية التي تكون قابلة للتفسير سريرياً ومعلوماتية بيولوجياً محدودة. لذلك، يظل تحديد الميزات الجزيئية التي ترصد تباين الساركوما العظمية والمخاطر الإنذارية عبر طبقات متعددة من البيانات أمراً بالغ الأهمية.
يُعد الشيخوخة الخلوية برنامجاً مستقراً لتوقف الدورة الخلوية، يتم تحفيزه عن طريق خلل التيلوميرات، وتضرر الحمض النووي DNA، والإجهاد التأكسدي، وتنشيط الجينات الورمية، والضغط العلاجي6. ويمكن للشيخوخة أن تحد من التكاثر الشاذ؛ ومع ذلك، يمكن للخلايا الهرمة أيضاً أن تعيد تشكيل البيئة الدقيقة للورم من خلال برامج التهابية، وبرامج كيموكينات، وعوامل نمو، وإعادة تشكيل المصفوفة خارج الخلوية7,8. وفي حالة الساركوما العظمية، قد تعكس الجينات المرتبطة بالشيخوخة كلاً من حالات الإجهاد الذاتية للخلايا الورمية ومكونات البيئة الدقيقة غير الخبيثة، ومع ذلك، لم يتم تقييم أهميتها الإنذارية وتنظيمها المكاني بشكل منهجي.
يشفر جين PPARG مستقبل غاما المنشط بمكاثر البيروكسيسوم، وهو مستقبل نووي منشط باللجين يشارك في عملية استقلاب الدهون، والتنظيم الالتهابي، والتمايز الخلوي، والتعديل المناعي9. ويعتمد دور PPARG في السرطان على السياق10؛ ففي بعض الحالات، يرتبط PPARG بحالات التمايز والحالات المضادة للالتهاب، بينما قد يدعم في حالات أخرى البرامج التكيفية للأورام أو السدى. ومع ذلك، لا يزال نمط تعبيره، وقيمته الإنذارية، وتوطنه الخلوي والمكاني في الساركوما العظمية غير محددة بشكل كامل.
في الدراسة الحالية، تم تحديد الجينات ذات التعبير المتباين في GSE99671 ومقاطعتها مع مجموعة جينات الشيخوخة CellAge، مما أسفر عن 105 جينات مرتبطة بالشيخوخة وذات تعبير متباين. بعد ذلك، استُخدمت بيانات البقاء على قيد الحياة من TARGET-OS، وعدة مناهج للتعلم الآلي ونمذجة البقاء، والتعديل السريري لترشيح PPARG كجين محوري. تم توصيف PPARG بشكل أكبر باستخدام تحليلات وظيفية شاملة وتحليلات للبيئة الدقيقة المناعية، والنسخ أحادي الخلية، والنسخ المكاني، والتحقق من التعبير الخارجي من GSE36001، والتحقق بواسطة qRT-PCR وWestern blot في خط خلايا الساركوما العظمية 143B وخلايا بانية العظم البشرية.
البروتوكول
استخدمت هذه الدراسة مجموعات بيانات عامة وخطوط خلايا للتحليل والتحقق، ولم تتضمن مشاركين بشريين أو عينات أنسجة سريرية؛ وبناءً عليه، لم يكن الحصول على موافقة أخلاقية مطلوباً.
تحليل التعبير التفاضلي في تقاطع GSE99671 وCellAge
تم الحصول على بيانات العد الخام ومعلومات تجميع العينات لـ GSE99671 من GEO11,12. تم تحليل ثماني عشرة زوجاً من عينات الساركوما العظمية والعينات الطبيعية المقابلة لها. أُجري تحليل التعبير التفاضلي المزدوج باستخدام DESeq2 مع صيغة التصميم ~ pair_id + condition، حيث مثّل pair_id تأثيرات الأفراد المزدوجة، بينما قارنت condition بين الأنسجة الورمية والأنسجة الطبيعية13. تم الإبقاء على الجينات التي تحتوي على عدات قراءة لا تقل عن 10 في ثلاث عينات على الأقل. عُرّف التعبير التفاضلي بأن تكون قيمة P المعدلة < 0.05، وطُبق حد أكثر صرامة وهو قيمة P معدلة < 0.05 و |log2FC| ≥ 1 لأغراض التصوير البياني. تم إيجاد التقاطع بين الجينات ذات التعبير التفاضلي و866 جيناً من جينات الشيخوخة في CellAge بعد تحويل رموز الجينات إلى أحرف كبيرة14. أُجري تحليل التعبير التفاضلي في برنامج R (الإصدار 4.3.2) باستخدام DESeq2 (الإصدار 1.40.2)، وحُسبت قيم P المعدلة باستخدام طريقة Benjamini-Hochberg.
مجموعة TARGET-OS والنمذجة الإنذارية
تم الحصول على البيانات النسخية والسريرية لمجموعة TARGET-OS من UCSC Xena15. واستُخلصت قيم التعبير لـ 105 جينات مختلفة التعبير مرتبطة بالشيخوخة الخلوية. شملت الدراسة 85 مريضاً تتوفر لديهم بيانات كاملة عن وقت البقاء، وحالة البقاء، وبيانات التعبير للجينات المرشحة، مع تسجيل 27 حالة وفاة. وحُللت قيم التعبير الجيني الموحدة باستخدام انحدار Cox أحادي المتغير16، وتحليل البقاء لكابلان-ماير (Kaplan-Meier)، وتحليل خصائص تشغيل المستقبل (ROC) المعتمد على الوقت17. كما استُخدم انحدار LASSO Cox18، وتحليل استقرار LASSO المتكرر، ونمذجة الغابة العشوائية للبقاء لتقييم استقرار الاختيار وأهمية المتغيرات19. وحُسبت درجة المحور المتكاملة والتصنيف السريري المتكامل باستخدام المعايير الثنائية الصريحة الموضحة أدناه. أُجريت تحليلات البقاء في لغة R باستخدام حزم survival (الإصدار 3.5-7)، وtimeROC (الإصدار 0.4)، وglmnet (الإصدار 4.1-8)، وrandomForestSRC (الإصدار 3.2.2). وبالنسبة للفحص أحادي المتغير بطريقة Cox للجينات المرشحة الـ 105، طُبق تصحيح بنجاميني-هوخبيرج لمعدل الاكتشافات الكاذبة (FDR)، واعتُبرت الجينات التي كان فيها FDR < 0.05 ذات دلالة إحصائية.
المعالجة المسبقة للنموذج، وتصنيف PPARG، وتحليل منحنى ROC المعتمد على الوقت
من بين 85 مريضاً حدثت 27 حالة وفاة، استُبعدت الجينات ذات التباين الصفري، وتم تعويض قيم التعبير المفقودة للجينات المرشحة باستخدام الوسيط، كما تم توحيد كل جين مرشح وفق مقياس z-score. وبالنسبة لتحليل Kaplan-Meier، تم تقسيم التعبير إلى فئتين بناءً على وسيط المجموعة: حيث خُصصت القيم التي تزيد بوضوح عن الوسيط لمجموعة التعبير العالي، والقيم التي تساوي الوسيط أو تقل عنه لمجموعة التعبير المنخفض (PPARG: n = 42 تعبير عالٍ و n = 43 تعبير منخفض). وكانت اختبارات Log-rank ثنائية الطرف. واستخدمت تحليلات ROC المعتمدة على الوقت حزمة timeROC مع تحديد event cause = 1، وترجيح احتمالية الرقابة العكسية الهامشية، وأوقات تقييم بلغت 365 و1,095 و1,825 يوماً، مع تعيين iid = FALSE. ولضمان أن تشير قيم العلامات الأعلى باستمرار إلى مخاطر أعلى، استُخدمت قيم التعبير الموحدة للجينات ذات معاملات Cox الموجبة، وضُربت في -1 بالنسبة للجينات الواقية ذات المعاملات السالبة.
طريقة LASSO وطريقة LASSO المكررة
تم تطبيق Cox LASSO باستخدام حزمة glmnet مع ضبط المعايير التالية: family = "cox"، وalpha = 1، مع إجراء معايرة مسبقة لدرجة z (وبالتالي تم ضبط standardize = FALSE)، واستخدام التحقق المتقاطع خماسي الطيات (five-fold cross-validation)، وtype.measure = "deviance"، وبذرة عشوائية 123. واستُخدم lambda.min كحل أساسي للمعاملات. أما تحليل الاستقرار فقد كرر عملية التحقق المتقاطع خماسي الطيات نفسها 300 مرة؛ حيث استخدم التكرار b البذرة 1000 + b (حيث b = 1,...,300). وبالنسبة لكل جين، كان تردد الاختيار هو نسبة التكرارات التي ظهر فيها معامل غير صفري عند lambda.min؛ كما تم تسجيل الاختيار غير الصفري عند lambda.1se.
الغابة العشوائية للبقاء
تم تطبيق غابة بقاء على جميع الجينات المرشحة المعيارية البالغ عددها 105 باستخدام randomForestSRC (الإصدار 3.2.2)، مع استخدام البذرة 123، و ntree = 1,000، و importance = TRUE، و na.action = "na.impute". تم الاحتفاظ بالإعدادات الافتراضية للحزمة الخاصة ببيانات البقاء: تقسيم log-rank، و mtry = 11 (سقف الجذر التربيعي لـ 105 من المتنبئات)، والحد الأدنى لحجم العقدة الطرفية = 15، و nsplit = 10 نقاط تقسيم عشوائية، وأخذ العينات بدون استبدال بكسر أخذ عينات 0.632، وأهمية المتغيرات بطريقة anti-split.
درجة مركز الربط المتكاملة
حصل كل جين من الجينات المرشحة ذات التعبير التفاضلي المرتبطة بـ CellAge والبالغ عددها 105 جينات على نقطة واحدة لكل معيار من المعايير الثنائية الستة التالية: (1) العضوية في تقاطع التعبير التفاضلي/CellAge (حصل جميع المرشحين على هذه النقطة لأن قيمة P المعدلة < 0.05 كانت مطلوبة قبل عملية التقييم)؛ (2) قيمة P الاسمية في تحليل Cox أحادي المتغير < 0.05؛ (3) قيمة P في اختبار Kaplan-Meier log-rank < 0.05؛ (4) متوسط المساحة تحت المنحنى (AUC) المعتمدة على الوقت لـ 3 و 5 سنوات ≥ 0.65؛ (5) تكرار اختيار lambda.min في repeated-LASSO عند المئوية السبعين أو أعلى بين المرشحين و > 0؛ و(6) أهمية الغابة العشوائية للبقاء (random-survival-forest) عند المئوية السبعين أو أعلى بين المرشحين و > 0. كانت جميع المعايير ذات وزن وحدة متساوٍ، مما أعطى درجة مركز ربط تتراوح من 0 إلى 6؛ وانتقلت الجينات التي سجلت ≥ 4 إلى مرحلة التعديل السريري (18 جيناً). كما تم تسجيل قيم FDR لـ Cox أحادي المتغير، واستُخدمت قيمة FDR < 0.05 للدلالة على أهمية الاختبارات المتعددة، إلا أن مؤشر التقييم المحدد مسبقاً استخدم قيمة P الاسمية < 0.05.
التصنيف المتكامل سريرياً
بعد دمج سجلات التعبير الجيني والسجلات السريرية، شملت التحليلات المعدلة 40 مريضاً لديهم سجلات كاملة للمتغيرات المصاحبة و13 حالة وفاة. كانت الدرجة النهائية عبارة عن درجة المحور (hub score) الأولية مضافاً إليها نقطة واحدة عن كل معيار من المعايير السبعة التالية: قيمة P المعدلة لاختبار Cox < 0.05، وقيمة P المعدلة لاختبار Cox < 0.10، وقيمة P لاختبار Cox للحساسية < 0.05 بعد استبعاد الجراحة النهائية، وقيمة P لاختبار Cox للحساسية < 0.10، ومتوسط AUC لمدة 3 و5 سنوات ≥ 0.65، وقيمة P لاختبار نسبة الاحتمالية (likelihood-ratio-test) < 0.10 للنموذج السريري والجيني مقابل النموذج السريري فقط، وقيمة delta AIC < 0. ونظراً لأن عتبتي 0.05 و0.10 كانتا متداخلتين، فإن القيمة P < 0.05 تمنح نقطتين، مما يعطي وزناً أكبر للأدلة الواضحة والمعنوية من اختبارات Cox المعدلة والحساسية. تراوح النطاق الإجمالي من 0 إلى 13؛ وتم حل حالات التعادل بناءً على قيمة P المعدلة الأصغر لاختبار Cox، تليها القيمة الأكبر لمتوسط AUC لمدة 3 و5 سنوات. حصل PPARG على جميع النقاط الست الأولية وجميع نقاط التكامل السريري السبع (13/13)، ليحتل المرتبة الأولى. وقد تم ذكر تحسن مؤشر C (C-index) بشكل وصفي ولم يتم تخصيص درجة له.
التعديل السريري
دُمجت الجينات المحورية المرشحة مع المتغيرات السريرية لـ TARGET-OS، والتي شملت الجنس، والعمر، وحالة المرض عند التشخيص، وموقع الورم الأولي، ومنطقة الورم المحددة، والجراحة النهائية. دخل في التحليلات المعدلة سريرياً أربعون مريضاً لديهم سجلات تعبير جيني وسجلات سريرية كاملة، بما في ذلك 13 حالة وفاة. وقورنت نماذج Cox التي تحتوي على المتغيرات السريرية فقط بنماذج تشمل المتغيرات السريرية بالإضافة إلى التعبير الجيني. استُخدم مؤشر C-index، ومعيار أكايكي للمعلومات (AIC)، وقيم P لاختبار نسبة الاحتمالية لتقييم تحسن النموذج. وأُجري تحليل الحساسية بعد إزالة متغير الجراحة.
تحليل الإثراء الوظيفي والبيئة المجهرية المناعية
تم تقسيم عينات TARGET-OS وفقاً لمستوى تعبير PPARG. واستُخدم التعبير التفاضلي بين المجموعتين (ذات التعبير العالي وذات التعبير المنخفض لـ PPARG) لإنشاء قوائم جينات مرتبة لتحليل إثراء مجموعة الجينات (GSEA)20. وكانت المسارات المعروضة هي Nemeth Inflammatory Response LPS Up، وBurton Adipogenesis 5، وBurton Adipogenesis 6، وKrieg KDM3A Targets Not Hypoxia، وReactome: Transcriptional Regulation By TP53، وFulcher Inflammatory Response Lectin Vs LPS Dn، وHollmann Apoptosis Via CD40 Dn، وZhou Inflammatory Response Live Dn، وWP: Fatty Acids And Lipoproteins Transport In Hepatocytes، وSweet Lung Cancer KRAS Up، وKEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway، وReactome: Fatty Acids. كما تم حساب درجة شيخوخة عامة باستخدام CellAge، واستُخدم تحليل ارتباط سبيرمان لتقييم الروابط بين PPARG وجينات الشيخوخة أو سمات البيئة المجهرية المناعية21. وقُيمت الفروق في درجات البيئة المجهرية بين مجموعتي التعبير العالي والمنخفض لـ PPARG باستخدام اختبارات لا معلمية مع تصحيح الاختبارات المتعددة.
تحليل النسخ في الخلية الواحدة
تم تحليل مجموعة بيانات منسوخة من خلية واحدة لسرطان العظم البشري منشورة مسبقاً باستخدام كائن تمت معالجته مسبقاً، حيث أُنجزت بالفعل عمليات مراقبة الجودة، وتقليل الأبعاد، والتجميع، والتعليق التوضيحي اليدوي22,23,24. شمل التحليل إجمالي 68,336 خلية و 32,297 جيناً. ولأغراض التفسير في النص الرئيسي، تم تبسيط التعليقات التوضيحية إلى 13 نوعاً رئيسياً من الخلايا: الخلايا البائية (B cells)، والخلايا الليفية المرتبطة بالسرطان (CAFs)، والخلايا في طور الدورة، والخلايا البطانية، والخلايا الحمراء، والخلايا البلعمية/الوحيدات، وخلايا سرطان العظم الخبيثة، والخلايا العضلية، والخلايا المتعادلة، والخلايا الشبيهة بناقضات العظم، والخلايا الحولية، وخلايا T/NK، والخلايا السدوية المرتبطة بالورم. استُخدمت مخططات تقليل الأبعاد، وتعبير السمات، والمخططات النقطية، ومخططات الكمان لتصور تموضع PPARG. وعُرِفت الخلايا الموجبة لـ PPARG بأنها الخلايا التي يزيد تعبيرها عن صفر. كما تم تقييم الاختلافات بين أنواع الخلايا باستخدام اختباري Kruskal-Wallis و Wilcoxon rank-sum مع تصحيح Benjamini-Hochberg. أُجريت تحليلات الخلية الواحدة في بيئة R باستخدام حزمة Seurat (الإصدار 5.0.1).
تحليل النسخ المكاني
استُخدمت عينة النسخ المكاني SP_BS3 لإنشاء كائن تعبير مكاني25,26. كانت عتبات مراقبة الجودة nFeature_Spatial ≥ 200 والنسبة المئوية للميتوكوندريا percent.mt ≤ 30، مما ترك 4,572 نقطة للتحليل. تم تطبيع البيانات، واختيار 3,000 جين عالي التباين، وأُجري تحجيم البيانات، وتحليل المكونات الرئيسية، وبناء مخطط الجوار، وتجميع النقاط المكانية، وتقليل الأبعاد. تم حساب درجة شيخوخة CellAge المكانية بعد إزالة PPARG من مجموعة الجينات لتجنب الارتباط الدائري. كما تم بناء وتقييم بصمات الخلايا البطانية، والخلايا الحولية، والبلعميات/الوحيدات، والسدى المرتبط بالأورام، والساركوما العظمية الخبيثة، والخلايا الشبيهة بناقضات العظم. استُخدم تحليل ارتباط سبيرمان لتقييم الروابط بين تعبير PPARG والدرجات المكانية. أُجري نقل التصنيف باستخدام مجموعة بيانات الخلية الواحدة كمرجع ومجموعة البيانات المكانية كاستعلام لاستنتاج درجات أنواع الخلايا المتوقعة لكل نقطة23,24. أُجريت تحليلات النسخ المكاني في لغة R باستخدام Seurat (الإصدار 5.0.1)، وطُبق تصحيح Benjamini-Hochberg FDR على جميع قيم P للارتباط المكاني.
التحقق الخارجي من التعبير الجيني في GSE36001
استُخدمت مجموعة بيانات GEO رقم GSE36001 حصرياً كمجموعة تحقق مستقلة للتعبير الجيني؛ ونظراً لعدم توفر نتائج البقاء على قيد الحياة، لم تُستخدم للتحقق من التنبؤ بالمرض11,27. شملت مجموعة البيانات 19 عينة من الساركوما العظمية وست عينات ضابطة طبيعية. استُخدم توصيف منصة GPL6102 لتحويل معرفات المجسات إلى رموز جينية. وعندما ارتبطت مجسات متعددة بنفس الجين، تم الاحتفاظ بالمجس الذي سجل أعلى متوسط تعبير جيني. قُيم التعبير التفاضلي بين المجموعتين الورمية والطبيعية باستخدام limma28. أُجريت التحليلات في برنامج R باستخدام limma (الإصدار 3.56.2)، وحُسبت قيم P المعدلة باستخدام طريقة Benjamini-Hochberg.
التحقق باستخدام qRT-PCR ولطخة ويسترن (Western blot)
أُجري التحقق التجريبي باستخدام خط خلايا الساركوما العظمية البشرية 143B وخلايا بانيات العظم البشرية. زُرعت خلايا الساركوما العظمية في وسط Dulbecco's modified Eagle's المدعم بـ 10% من مصل جنين البقر و1% من البنسلين-ستربتومايسين عند 37 °C في جو رطب يحتوي على 5% CO₂، وتم نقلها باستخدام 0.25% trypsin-EDTA عند وصول التلاقي الخلوي إلى 80%–90%. تم الحفاظ على خلايا بانيات العظم البشرية وفقاً لظروف الزراعة الموصى بها. تم التأكد من خلو جميع خطوط الخلايا من التلوث بالمايكوبلازما. بالنسبة لـ qRT-PCR، استُخلص الرنا (RNA) الكلي باستخدام كاشف استخلاص RNA يعتمد على الفينول-جوانيدينيوم، وقُدر تركيز الرنا ونقاوته طيفياً. تم تحويل ميكروغرام واحد من الرنا الكلي إلى cDNA باستخدام كاشف النسخ العكسي وفقاً للبروتوكول الموصى به. أُجريت عملية qRT-PCR باستخدام كيمياء تعتمد على صبغة فلورية مرتبطة بالـ DNA تحت ظروف الدورات التالية: مسخ أولي عند 95 °C لمدة 30 s، يليه 40 دورة عند 95 °C لمدة 5 s و60 °C لمدة 30 s، مع تحليل منحنى الانصهار لتأكيد خصوصية التضخيم. أُجري كل تفاعل في ثلاث مكررات تقنية، ونُفذت ثلاث تجارب بيولوجية مستقلة. استُخدم GAPDH كضابط داخلي، وحُسب التعبير النسبي لـ PPARG باستخدام طريقة 2-ΔΔCt29. كان بادئ PPARG الأمامي 5'-CGAAGACATTCCATTCACAAGAACAG-3'، والبادئ العكسي 5'-AGATGCAGGCTCCACTTTGATTG-3'.
أُجري تحليل لطخة ويسترن (Western blotting) لفحص التعبير البروتيني لـ PPARG. تم تحلل الخلايا في محلول منظم لـ مقايسة الترسيب المناعي الإشعاعي (radioimmunoprecipitation assay buffer) المضاف إليه مثبطات البروتياز، وحُددت تركيزات البروتين باستخدام مقايسة حمض البيسينكونينيك (bicinchoninic acid assay). فُصلت كميات متساوية من البروتين (30 µg لكل ممر) بواسطة الفصل الكهربائي للهلام متعدد الأكريلاميد ونوديسيل كبريتات الصوديوم بتركيز 10%، ثم نُقلت إلى أغشية بولي فينيليدين ثنائي الفلوريد. وبعد الحجب باستخدام حليب خالي الدسم بتركيز 5% لمدة 1 h في درجة حرارة الغرفة، حُضنت الأغشية طوال الليل عند 4 °C مع أجسام مضادة أولية ضد PPARG (بنسبة 1:1,000) و GAPDH (بنسبة 1:5,000)، متبوعة بحضن مع جسم مضاد ثانوي مقترن ببيروكسيداز الفجل (بنسبة 1:5,000) لمدة 1 h في درجة حرارة الغرفة. تم تصوير حزم البروتين باستخدام الكشف بالتألق الكيميائي، وأُجريت ثلاث تجارب مستقلة. كما تم قياس شدة الحزم باستخدام برنامج لتحليل الصور30. وحُللت الفروق بين المجموعات باستخدام اختبار t لستودنت (Student's t tests) غير المقترن وذو الذيلين. عُرضت البيانات كمتوسط ± الانحراف المعياري (SD) لثلاث تجارب مستقلة، واعتُبرت قيمة P < 0.05 ذات دلالة إحصائية. أُجريت التحليلات الإحصائية للبيانات التجريبية باستخدام برنامج للتحليل الإحصائي (الإصدار 9.0).
التحليل الإحصائي
ما لم يُنص على خلاف ذلك، أُجريت جميع التحليلات المعلوماتية الحيوية باستخدام برنامج R (الإصدار 4.3.2). ثنائي الجانب P قيم < اعتُبرت القيم التي تقل عن 0.05 دالة إحصائياً. وقُيمت الارتباطات باستخدام معامل ارتباط سبيرمان لرتب المتغيرات (ρ). أُجري تصحيح الاختبارات المتعددة باستخدام طريقة Benjamini-Hochberg لمعدل الاكتشاف الخاطئ (FDR) حيثما كان ذلك مناسباً. عُرضت البيانات التجريبية في صورة المتوسط الحسابي ± والانحراف المعياري (SD)، وتمت المقارنة باستخدام اختبار Student's ثنائي الذيل لعينات غير مرتبطة تـ الاختبارات. وأُجريت التحليلات الإحصائية التجريبية باستخدام برنامج للتحليل الإحصائي (الإصدار 9.0).
النتائج
حدد GSE99671 عدد 105 من الجينات المعبّر عنها تفاضلياً والمرتبطة بالشيخوخة في CellAge
شمل GSE99671 عدد 36 عينة من 18 نسيجاً مقترناً. وبعد تصفية الجينات ذات التعداد المنخفض، تم الاحتفاظ بـ 16,683 جيناً. وعند قيمة P المعدلة < 0.05، تبين أن 2,248 جيناً معبّر عنها تفاضلياً. وتحت عتبة أكثر صرامة حيث كانت قيمة P المعدلة < 0.05 و |log2FC| ≥ 1، كانت هناك 594 جيناً ذات دلالة إحصائية، بما في ذلك 102 جيناً بزيادة في التعبير و 492 جيناً بانخفاض في التعبير في الأورام (الشكل 1A,B). وأدى تقاطع الـ 2,248 جيناً المعبّر عنها تفاضلياً مع 866 جيناً من CellAge إلى تحديد 105 جينات مرتبطة بالشيخوخة ومعبّر عنها تفاضلياً (الشكل 1C). وقد انخفض تعبير PPARG في GSE99671، حيث كانت قيمة log2FC = -0.644، وقيمة P = 0.00451، وقيمة P المعدلة = 0.0309. وفي 13 من أصل 18 زوجاً، كان تعبير PPARG في النسيج الطبيعي أعلى منه في النسيج الورمي، مع قيمة P لاختبار Wilcoxon المقترن تساوي 0.0294 (الشكل 1D).
حدد الفحص الإنذاري متعدد النماذج جين PPARG كجين مرشح أساسي
في دراسة TARGET-OS، تم إدراج 85 مريضاً مع تسجيل 27 حالة وفاة. أسفر الفحص المتكامل لـ 105 جينات مرتبطة بالشيخوخة ومعبر عنها بشكل تفاضلي، باستخدام تحليل انحدار كوكس أحادي المتغير، وتحليل كابلان-ماير، وتحليل ROC للبقاء، وLASSO، وLASSO المتكرر، ونمذجة الغابة العشوائية للبقاء، عن 18 جيناً محورياً مرشحاً قبل التعديل السريري (الشكل 2A). ارتبط PPARG بالبقاء الإجمالي في تحليل كوكس أحادي المتغير (HR = 0.603, 95% CI = 0.454–0.802, P = 0.000494, FDR = 0.0447)، مما يشير إلى أن التعبير المرتفع لـ PPARG ارتبط بانخفاض خطر الوفاة. وأسفر تحليل كابلان-ماير الذي قارن بين مجموعات التعبير المرتفع والمنخفض عن قيمة P = 0.00784 (الشكل 2B). وكانت قيم AUC المعتمدة على الوقت عند سنة و3 سنوات و5 سنوات هي 0.603 و0.760 و0.776 على التوالي (الشكل 2C). أظهر PPARG تردد اختيار في LASSO المتكرر قدره 0.920 وأهمية في الغابة العشوائية للبقاء قدرها 0.0398 (الشكل 2D–F). وكانت درجة المحور الأولية لـ PPARG هي 6/6 لأنه استوفى جميع معايير الفحص الستة المحددة مسبقاً.
أيد التعديل السريري الارتباط الإنذاري لـ PPARG
بعد دمج المتغيرات السريرية المصاحبة، ظل PPARG مرتبطاً بشكل ملحوظ بالبقاء على قيد الحياة بشكل عام (HR المعدل = 0.224، 95% CI = 0.085–0.589، P = 0.00241؛ الشكل 2G). حقق النموذج السريري وحده مؤشر C-index قدره 0.707 وقيمة AIC قدرها 89.921 (الجدول التكميلي 1). وأدت إضافة PPARG إلى زيادة C-index إلى 0.829، وخفض AIC إلى 78.466، وتحسين مطابقة النموذج بشكل ملحوظ وفقاً لاختبار نسبة الاحتمالية (P = 0.000244؛ الجدول التكميلي 2، الشكل 2H،I). كما حافظ تحليل الحساسية بعد استبعاد الجراحة النهائية على الارتباط الوقائي لـ PPARG (HR = 0.249، P = 0.00185؛ الجدول التكميلي 3، الشكل 2J). حقق PPARG أعلى درجة تكامل سريري بلغت 13 (درجة المحور الأولية 6 مضافاً إليها سبع نقاط تكامل سريري)، وأظهر قيم AUC النهائية لـ 3 و5 سنوات بلغت 0.770 و0.813 على التوالي (الشكل 2K).
السمات الوظيفية والمناعية للبيئة الدقيقة المرتبطة بـ PPARG
أظهر تحليل GSEA عند المقارنة بين المجموعات ذات التعبير العالي والمنخفض لـ PPARG وجود: Nemeth Inflammatory Response LPS Up، وBurton Adipogenesis 5، وBurton Adipogenesis 6، وKrieg KDM3A Targets Not Hypoxia، وReactome: Transcriptional Regulation By TP53، وFulcher Inflammatory Response Lectin Vs LPS Dn، وHollmann Apoptosis Via CD40 Dn، وZhou Inflammatory Response Live Dn، وWP: Fatty Acids And Lipoproteins Transport In Hepatocytes، وSweet Lung Cancer KRAS Up، وKEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway، وReactome: Fatty Acids (الشكل 3A). وفي بيانات TARGET-OS الكلية، لم يكن PPARG مرتبطاً بشكل معنوي بدرجة شيخوخة الخلايا الإجمالية CellAge (Spearman ρ = 0.022, P = 0.837؛ الشكل 3B)، ولكنه ارتبط بالعديد من جينات CellAge الفردية (الشكل 3C). وأظهر تحليل البيئة الدقيقة المناعية وجود ارتباطات إيجابية بين PPARG وكل من الخلايا البلعمية (ρ = 0.485, FDR = 2.7 × 10⁻⁵)، وخلايا T من نوع CD8 (ρ = 0.410, FDR = 5.88 × 10⁻⁴)، والبصمة الشبيهة بناقضات العظم (ρ = 0.383, FDR = 0.00120)، والعدلات (ρ = 0.376, FDR = 0.00120)، والخلايا التغصنية (ρ = 0.370, FDR = 0.00123). وأظهرت الأورام ذات التعبير العالي لـ PPARG بصمات أعلى للخلايا الشبيهة بناقضات العظم، والخلايا البلعمية، وخلايا T من نوع CD8، والخلايا التغصنية، والخلايا الوحيدة، والعدلات، وخلايا NK، والخلايا البطانية بعد تصحيح FDR (الجدول التكميلي 4، الشكل 3D،E).
حددت ترانسكريبتوميات الخلية الواحدة موقع PPARG في المقصورات الوعائية والبيئية الدقيقة
احتوت مجموعة بيانات الخلية الواحدة على 68,336 خلية و32,297 جيناً. اختلف تعبير PPARG بشكل ملحوظ بين أنواع الخلايا (الشكل 4A). لوحظ أعلى متوسط تعبير في الخلايا البطانية (متوسط التعبير = 0.540؛ نسبة الإيجابية = 44.33%)، والخلايا الحوطية (متوسط التعبير = 0.439؛ نسبة الإيجابية = 41.61%)، والبلعميات/الوحيدات (متوسط التعبير = 0.363؛ نسبة الإيجابية = 31.62%)، والخلايا السدوية المرتبطة بالأورام (متوسط التعبير = 0.361؛ نسبة الإيجابية = 44.10%؛ الشكل 4B–E). عبّرت مجموعة فرعية من خلايا الساركوما العظمية الخبيثة عن PPARG (متوسط التعبير = 0.163؛ نسبة الإيجابية = 16.70%)، ولكن التعبير في خلايا الساركوما العظمية الخبيثة لم يكن أعلى بشكل ملحوظ منه في الخلايا الأخرى (FDR = 0.151). أشارت هذه النتائج إلى أن تعبير PPARG في الساركوما العظمية عكس بشكل أساسي حالات البيئة الدقيقة الوعائية والنخاعية والسدوية بدلاً من أن يكون مقيداً بالخلايا الخبيثة (الشكل 4F).
ربط علم النسخ المكاني جين PPARG بالحالات المكانية المرتبطة بالشيخوخة والمنافذ الوعائية
بعد مراقبة الجودة، تم الاحتفاظ بـ 4,572 نقطة مكانية من SP_BS3 وتجميعها في سبع عناقيد مكانية (الشكل 5A). يوضح الشكل 5B التوزيع المكاني لـ nFeature_Spatial (الجينات المكتشفة لكل نقطة). وبشكل منفصل، من بين 866 جينًا من CellAge، تم مطابقة 845 جينًا في مصفوفة التعبير المكاني (97.58%). أظهر PPARG تعبيرًا مكانيًا بؤريًا (الشكل 5C). وأظهرت درجة الشيخوخة المكانية لـ CellAge، والتي حُسبت بعد إزالة PPARG، ارتباطًا إيجابيًا ضعيفًا ولكن ذا دلالة إحصائية مع تعبير PPARG (ρ = 0.0692, P = 3.0 × 10⁻⁶, FDR = 1.9 × 10⁻⁵; الشكل 5D). كما أظهر تسجيل المنافذ المكانية ارتباطات إيجابية بين PPARG ودرجة الخلايا البطانية (ρ = 0.0433, FDR = 0.00592) ودرجة الخلايا الحولية (ρ = 0.0367, FDR = 0.0181)، بينما ارتبط PPARG ارتباطًا سلبيًا بدرجة الساركوما العظمية الخبيثة (ρ = -0.0592, FDR = 0.000219) ودرجة السدى الورمي (ρ = -0.0531, FDR = 0.000774; الجدول التكميلي 5, الشكل 5E). وبالمثل، أظهر تحليل نقل الملصقات ارتباطات إيجابية مع درجة تنبؤ الخلايا البطانية (ρ = 0.0507, FDR = 0.00120) ودرجة تنبؤ الخلايا الحولية (ρ = 0.0394, FDR = 0.0123)، إلى جانب ارتباط سلبي مع درجة تنبؤ خلايا الساركوما العظمية الخبيثة (ρ = -0.0699, FDR = 1.1 × 10⁻⁵; الشكل 5F–H).
دعم التعبير الخارجي والتحقق التجريبي انخفاض تنظيم PPARG
تضمنت مجموعة GSE36001 نحو 19 عينة من الساركوما العظمية وستة ضوابط طبيعية. وكان PPARG منخفض التنظيم بشكل ملحوظ في الساركوما العظمية (logFC = -1.429, P = 0.00730، وقيمة P المعدلة = 0.0435؛ الشكل 6A). وفي التحقق القائم على الخلايا، كان تعبير mRNA لـ PPARG أقل بكثير في خلايا الساركوما العظمية 143B منه في خلايا بانية العظم البشرية عن طريق qRT-PCR (P < 0.001؛ الشكل 6B). كما انخفض تعبير بروتين PPARG بشكل ملحوظ في خلايا 143B عن طريق Western blotting (P < 0.01؛ الشكل 6C,D). وقد دعمت هذه النتائج المستمدة من المجموعة الخارجية ومستوى mRNA ومستوى البروتين بشكل متسق انخفاض تعبير PPARG في الساركوما العظمية. لم تتضمن GSE36001 نتائج البقاء على قيد الحياة، وبالتالي وفرت فقط تحققاً من التعبير الخارجي، وليس تحققاً إنذارياً مستقلاً.
توافر البيانات:
جميع مجموعات البيانات المستخدمة في هذه الدراسة متاحة للعموم. تم الحصول على GSE99671 و GSE36001 من قاعدة بيانات Gene Expression Omnibus (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE99671; https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE36001). وتم تحميل البيانات الترانسكريبتومية والسريرية الخاصة بـ TARGET-OS من UCSC Xena (https://xena.ucsc.edu/). كما تم الحصول على الجينات المرتبطة بالشيخوخة من CellAge: The Database of Cell Senescence Genes، وهي جزء من موارد الجينوم لشيخوخة الإنسان Human Ageing Genomic Resources (https://genomics.senescence.info/cells/). أما مجموعات بيانات الترانسكريبتوميا المكانية والخلية الواحدة للساركوما العظمية البشرية فقد تم الحصول عليها من الأطلس المنشور ومستودع GitHub المرتبط به (https://github.com/zhengxj1/A-Single-Cell-and-Spatially-Resolved-Atlas-of-Human-Osteosarcomas). وتم الحصول على مجموعات الجينات لتحليل الإثراء من MSigDB (https://www.gsea-msigdb.org/gsea/msigdb/). وقد تم تجميع البيانات المعالجة الناتجة في هذه الدراسة ونصوص التحليل المستخدمة لإعادة إنتاج النتائج المذكورة وتقديمها كـ الملف التكميلي 1.
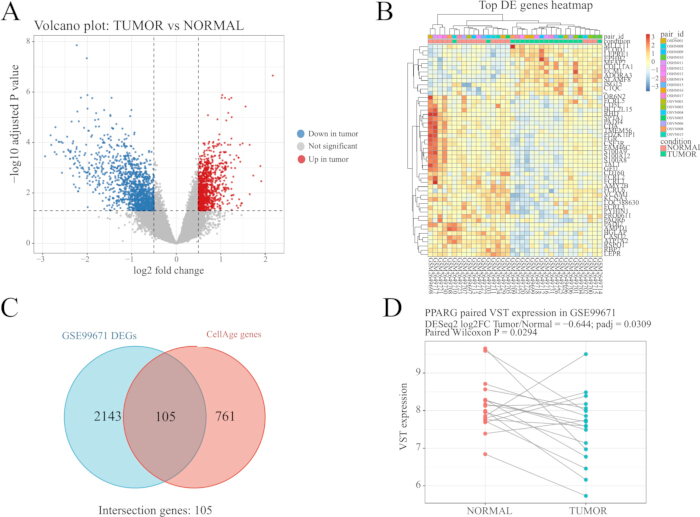
الشكل 1: تحديد الجينات ذات التعبير المتباين والجينات المرشحة المرتبطة بالشيخوخة والمستمدة من CellAge في الساركوما العظمية. (A) مخطط بركاني (Volcano plot) يوضح الجينات ذات التعبير المتباين بين أنسجة الساركوما العظمية وأنسجة التحكم غير الورمية المقترنة في مجموعة بيانات GSE99671. تم إبراز الجينات التي زاد تعبيرها أو انخفض تعبيرها بشكل ملحوظ وفقًا لمعايير القطع المحددة مسبقًا. (B) خريطة حرارية توضح أنماط التعبير للجينات الممثلة ذات التعبير المتباين عبر عينات الساركوما العظمية وعينات التحكم المقترنة في GSE99671. (C) مخطط فين يوضح التقاطع بين الجينات ذات التعبير المتباين في GSE99671 والجينات المرتبطة بالشيخوخة في CellAge. (D) مقارنة التعبير المقترن لـ PPARG بين أنسجة الساركوما العظمية وأنسجة التحكم غير الورمية المطابقة في GSE99671. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
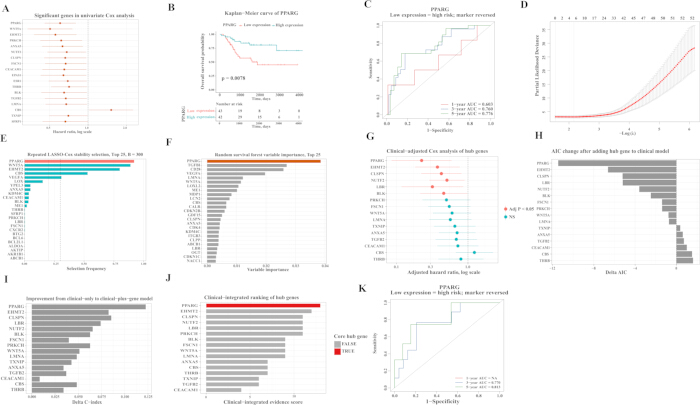
الشكل 2: تحليلات البقاء المعدلة سريرياً وباستخدام تعلم الآلة تحدد PPARG كجين محور تنبؤي أساسي مرتبط بالهرم في الساركوما العظمية. (A) مخطط غابة يوضح نتائج انحدار Cox أحادي المتغير للجينات المرشحة المرتبطة بالهرم في مجموعة TARGET-OS. (B) منحنى بقاء Kaplan–Meier يقارن البقاء الإجمالي بين المرضى الذين لديهم تعبير عالٍ عن PPARG وتعبير منخفض عن PPARG. (C) منحنيات ROC المعتمدة على الوقت لتقييم الأداء التنبؤي لـ PPARG بالنسبة للبقاء الإجمالي. (D) منحنى التحقق المتبادل لانحدار LASSO Cox لاختيار الجينات المرشحة التنبؤية. (E) تحليل استقرار LASSO المتكرر يوضح تكرارات اختيار lambda.min عبر 300 تكرار خماسي الطيات. (F) تحليل غابة البقاء العشوائية يوضح درجات أهمية المتغيرات من 1,000 شجرة. (G) مخطط غابة يوضح نتائج انحدار Cox المعدل سريرياً للجينات المحورية المرشحة. (H) تغيرات AIC بعد إضافة الجينات المحورية الفردية إلى النموذج السريري. (I) تحسن مؤشر C-index بعد إضافة الجينات المحورية الفردية إلى النموذج السريري. (J) التصنيف النهائي للدرجة السريرية المتكاملة (النطاق 0–13) للجين المحوري المرشح. (K) منحنيات ROC المعتمدة على الوقت لـ PPARG في المجموعة الفرعية للتحليل السريري المكونة من 40 مريضاً، وتوضح قيم AUC لمدة 3 و5 سنوات؛ بينما كانت قيمة AUC لسنة واحدة غير قابلة للتقدير. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
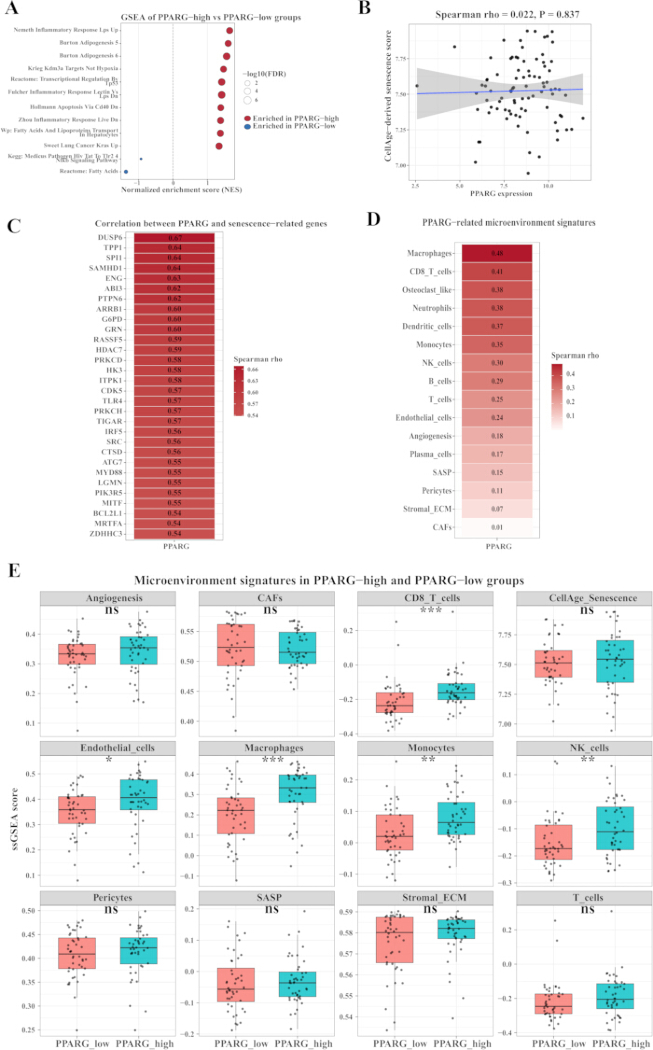
الشكل 3: تحليل الإثراء الوظيفي المرتبط بـ PPARG وتحليل البيئة المجهرية المناعية. (A) مخطط فقاعي لـ GSEA يقارن بين المجموعات ذات التعبير العالي لـ PPARG والمجموعات ذات التعبير المنخفض لـ PPARG، ويعرض: Nemeth Inflammatory Response LPS Up، وBurton Adipogenesis 5، وBurton Adipogenesis 6، وKrieg KDM3A Targets Not Hypoxia، وReactome: Transcriptional Regulation By TP53، وFulcher Inflammatory Response Lectin Vs LPS Dn، وHollmann Apoptosis Via CD40 Dn، وZhou Inflammatory Response Live Dn، وWP: Fatty Acids And Lipoproteins Transport In Hepatocytes، وSweet Lung Cancer KRAS Up، وKEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway، وReactome: Fatty Acids. (B) الارتباط بين PPARG ودرجة شيخوخة CellAge الإجمالية في بيانات bulk TARGET-OS. (C) الارتباطات بين PPARG وجينات CellAge الفردية. (D) الارتباطات بين PPARG وبصمات البيئة المجهرية المناعية. (E) الاختلافات في درجات البيئة المجهرية بين المجموعات ذات التعبير العالي لـ PPARG والمجموعات ذات التعبير المنخفض لـ PPARG. تم تقييم الارتباطات باستخدام معامل ارتباط رتب سبيرمان (ρ)، وحُسبت قيم P المعدلة باستخدام طريقة Benjamini-Hochberg. الاختصارات: GSEA = تحليل إثراء مجموعة الجينات؛ NF-κB = العامل النووي كابا-بي؛ JAK-STAT = كيناز جانوس ومنظم ومحول إشارات النسخ؛ IL-12 = إنترلوكين-12؛ FDR = معدل الاكتشاف الكاذب. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
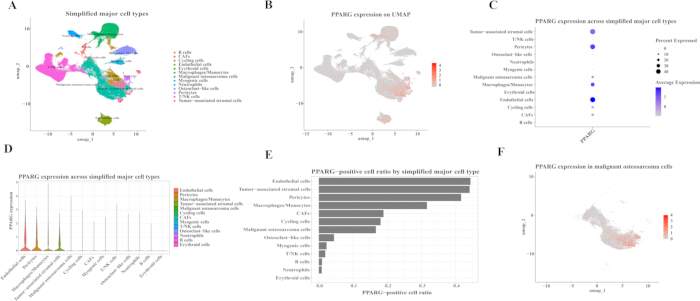
الشكل 4: تموضع PPARG عبر المكونات الخلوية في بيانات النسخ أحادية الخلية لسرطان العظام. (A) تصور UMAP لأنواع الخلايا الرئيسية في مجموعة بيانات النسخ أحادية الخلية لسرطان العظام البشري بعد التعليق التوضيحي اليدوي المبسط. (B) مخطط FeaturePlot يوضح التوزيع العالمي لتعبير PPARG عبر الخلايا المفردة. (C) مخطط DotPlot يوضح تعبير PPARG عبر أنواع الخلايا الرئيسية. (D) مخطط Violin يوضح مستويات تعبير PPARG في أنواع الخلايا المختلفة. (E) مخطط شريطي يوضح نسبة الخلايا الموجبة لـ PPARG في كل نوع رئيسي من الخلايا. (F) تصور UMAP يوضح تعبير PPARG في خلايا سرطان العظام الخبيثة. الاختصار: UMAP = التقريب والاسقاط المتشعب الموحد. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
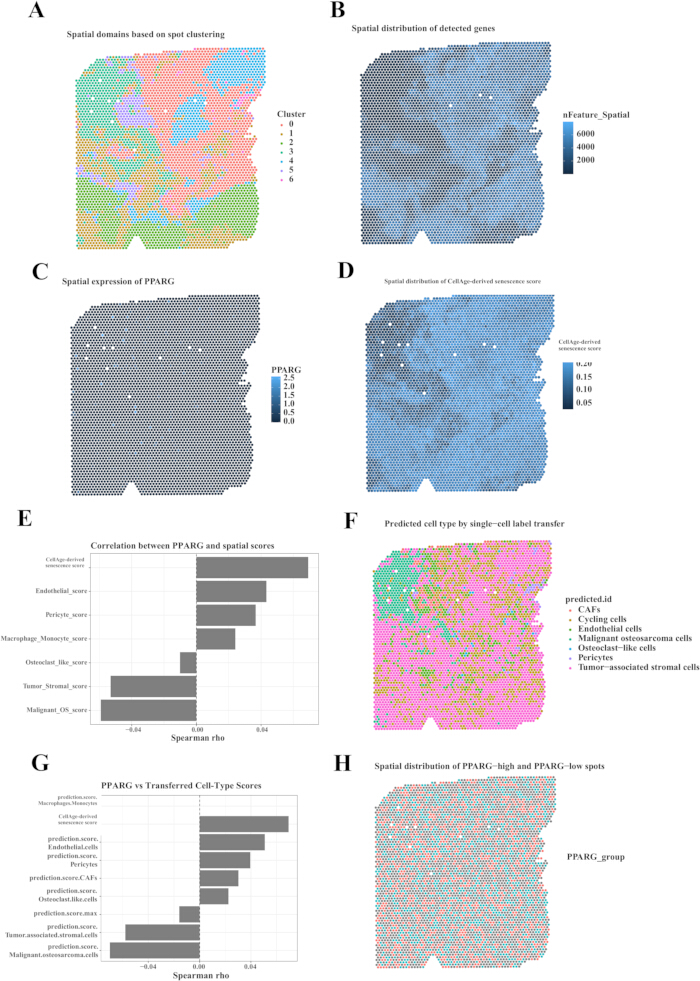
الشكل 5: التوطين النسخي المكاني لـ PPARG والسمات المكانية المرتبطة بالشيخوخة في الساركوما العظمية. (A) التوزيع المكاني للعناقيد المحددة نسخيًا في المقطع النسخي المكاني للساركوما العظمية SP_BS3. (B) التوزيع المكاني للجينات المكتشفة لكل نقطة، كما يظهر من خلال nFeature_Spatial. (C) نمط التعبير المكاني لـ PPARG عبر نقاط SP_BS3. (D) التوزيع المكاني لدرجة الشيخوخة المشتقة من CellAge. (E) تحليل الارتباط بين تعبير PPARG ودرجة الشيخوخة المكانية المشتقة من CellAge أو درجات الحيز البيئي الخلوي. (F) خريطة تنبؤ بنقل العلامات توضح نوع الخلية السائد المشتق من الخلية الواحدة لكل نقطة مكانية. (G) تحليل الارتباط بين تعبير PPARG، ودرجة الشيخوخة المشتقة من CellAge، ودرجات تنبؤ نوع الخلية المشتقة من نقل العلامات. (H) التوزيع المكاني للنقاط ذات التعبير المرتفع لـ PPARG والنقاط ذات التعبير المنخفض لـ PPARG. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
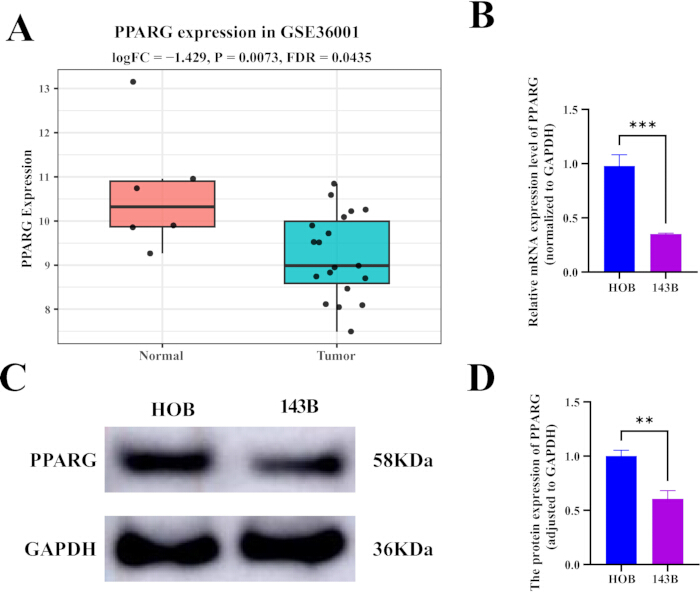
الشكل 6: التعبير الخارجي والتحقق التجريبي من انخفاض تعبير PPARG في الساركوما العظمية. (A) مخطط صندوقي يوضح مستويات تعبير PPARG في عينات الساركوما العظمية (n = 19) وعينات التحكم الطبيعية (n = 6) في مجموعة بيانات GSE36001. (B) تحليل qRT-PCR لتعبير PPARG mRNA في خلايا الساركوما العظمية البشرية 143B وخلايا التحكم من الخلايا البانية للعظم البشرية. (C) لطخة ويسترن ممثلة تظهر تعبير بروتيني PPARG و GAPDH في خلايا التحكم من الخلايا البانية للعظم البشرية وخلايا الساركوما العظمية 143B. استُخدم GAPDH كضابط تحميل. (D) القياس الكثافي لنطاقات لطخة ويسترن يوضح مستويات بروتين PPARG النسبية المعيرة وفقاً لـ GAPDH. في (B) و (D)، تم عرض البيانات كمتوسط ± SD من ثلاث تجارب مستقلة. P < 0.01 و P < 0.001 مقابل مجموعة التحكم من الخلايا البانية للعظم البشرية، كما تم تحديده باستخدام اختبار Student’s t-test غير المزدوج ثنائي الذيل. الاختصارات: qRT-PCR = تفاعل البوليميراز المتسلسل الكمي مع النسخ العكسي؛ GAPDH = جليسيرالدهيد-3-فوسفات ديهايدروجيناز؛ SD = الانحراف المعياري. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الجدول التكميلي 1: أداء نموذج كوكس السريري فقط في مجموعة TARGET-OS. مؤشر C، ومعيار AIC، وملخص نموذج كوكس الذي تم بناؤه باستخدام المتغيرات السريرية وحدها، بما في ذلك الجنس، والعمر، وحالة المرض عند التشخيص، وموقع الورم الأولي، ومنطقة الورم المحددة، وحالة الجراحة النهائية. الاختصار: AIC = معيار أكايكي للمعلومات. يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 2: مقارنة بين نماذج Cox السريرية فقط والنماذج السريرية مضافاً إليها الجينات. نتائج مقارنة النماذج بعد إضافة جينات محورية مرشحة فردية إلى النموذج السريري، بما في ذلك مؤشر C (C-index)، ومعيار أكايكي للمعلومات (AIC)، وإحصائيات اختبار نسبة الاحتمالية، ومقاييس تحسين النموذج. الاختصارات: AIC = معيار أكاike للمعلومات. يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 3: تحليل الحساسية بعد إزالة متغير الجراحة النهائية. نتائج انحدار كوكس لتحليل الحساسية لتقييم ما إذا كانت الارتباطات الإنذارية للجينات المركزية المرشحة، ولا سيما PPARG، قد ظلت مستقرة بعد استبعاد متغير الجراحة النهائية من النموذج السريري المعدل. يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 4: توقيعات البيئة المجهرية المناعية والسدى المرتبطة بـ PPARG في TARGET-OS. نتائج الارتباط ومقارنة المجموعات بين تعبير PPARG وتوقيعات ssGSEA المناعية، والسدى، والوعائية، والالتهابية، والمتعلقة بـ SASP، بما في ذلك معاملات ارتباط سبيرمان، وقيم P، وقيم P المعدلة، والمقارنات بين PPARG المرتفع و PPARG المنخفض. الاختصارات: SASP = النمط الإفرازي المرتبط بالشيخوخة؛ ssGSEA = تحليل إثراء مجموعة الجينات للعينة الواحدة. يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 5: تحليل الارتباط الترانسكريبتومي المكاني لـ PPARG في SP_BS3. نتائج الارتباط بين تعبير PPARG ودرجة الشيخوخة المكانية المشتقة من CellAge، ودرجات النيش البيئي الخلوي، ودرجات تنبؤ نوع الخلية المشتقة من نقل العلامات في المقطع الترانسكريبتومي المكاني لسرطان العظم SP_BS3. يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
رشحت هذه الدراسة جين PPARG كجين تنبئي مرشح مرتبط بالشيخوخة في الساركوما العظمية، وذلك من خلال دمج تحليل التعبير التفاضلي، وتقاطع جينات CellAge، ونمذجة البقاء على قيد الحياة في TARGET-OS، والتعديل السريري، والتوطين متعدد الأوميكس، والتحقق التجريبي. ويتوافق هذا الإطار التحليلي مع التركيز الحالي على أبحاث الساركوما العظمية القائمة على المعلومات الجزيئية ومصادر جينات الشيخوخة المنسقة لتفسير البيولوجيا المرتبطة بالشيخوخة14,31. وقد تبين أن تعبير PPARG كان منخفضاً في الساركوما العظمية مقارنة بالأنسجة الطبيعية، وارتبط انخفاض تعبير PPARG بسوء البقاء الإجمالي في TARGET-OS. وتشير هذه النتائج إلى أن PPARG لم يكن متغيراً من الناحية النسخية في الساركوما العظمية فحسب، بل قد يحمل أيضاً معلومات تنبئية ذات صلة سريرياً. ومع ذلك، ونظراً لأن عملية اختيار المرشح وتقييم النموذج قد أُجريت في نفس مجموعة TARGET-OS (85 مريضاً، 27 حالة وفاة)، فإن التحسن الملحوظ في أداء النموذج كان عرضة للتفاؤل المفرط والفرط في التخصيص؛ وبناءً على ذلك، يجب اعتبار القيمة التنبئية لـ PPARG كفرضية مولدة حتى يتم التحقق منها في مجموعة مستقلة من مرضى الساركوما العظمية. ومع ذلك، يجب تفسير بيولوجيا PPARG بطريقة تعتمد على السياق، لأن الدراسات التجريبية على الساركوما العظمية أبلغت عن تأثيرات مضادة للأورام لتعديل مستقبلات PPAR-gamma/النووية، وأيضاً عن برامج ناقضات العظم المرتبطة بـ PPARG والتي قد تدعم تطور المرض32,33,34.
تمثلت نقطة دقيقة ومهمة في أنه لا ينبغي تفسير PPARG على أنه مجرد بديل بسيط لدرجة CellAge الإجمالية. ففي بيانات TARGET-OS الكلية (bulk data)، لم يكن PPARG مرتبطاً بشكل ملحوظ بدرجة الشيخوخة العامة لـ CellAge، بينما أظهر PPARG في النسخ المكاني (spatial transcriptomics) ارتباطاً ضعيفاً ولكنه ملحوظ بدرجة CellAge المحسوبة بعد استبعاد PPARG. وقد يعكس هذا الاختلاف تأثيرات تكوين الخلايا في البيانات الكلية، والطبيعة متعددة الوظائف لمجموعات جينات الشيخوخة، والإثراء المحلي للمنافذ البيئية الدقيقة في البقاع المكانية. وقد أكدت الدراسات التوافقية والنسخية أن الشيخوخة الخلوية غير متجانسة، وديناميكية، وتعتمد على نوع الخلية، والعامل المسبب للإجهاد، وسياق النسيج، في حين أن برامج SASP يمكن أن تؤدي تأثيرات متضاربة أثناء تطور السرطان25,35,36,37. وبناءً على ذلك، تم تعريف PPARG تحفظياً على أنه جين إنذاري مرتبط بالشيخوخة مشتق من CellAge بدلاً من اعتباره محركاً مثبتاً للشيخوخة. وعليه، فإن تصنيف PPARG كونه مرتبطاً بالشيخوخة يعكس عضويته في مجموعة جينات CellAge وليس مشاركته الميكانيكية المثبتة في الشيخوخة، ولا ينبغي استخدام PPARG كبديل كمي لنشاط الشيخوخة العام.
وبشكل عام، أوضحت هذه النتائج المكانية التمييز بين الدلالة الإحصائية والأهمية البيولوجية. فمع وجود 4,572 بقعة مكانية، يمكن حتى للارتباطات الضعيفة جدًا أن تتجاوز عتبات الدلالة التقليدية؛ فعلى سبيل المثال، الارتباط بين PPARG ودرجة الشيخوائية المكانية CellAge (ρ = 0.0692) فسر حوالي 0.48% فقط من التباين، ومع ذلك وصلت قيمة P إلى 3.0 × 10⁻⁶ لأن العدد الكبير من البقع وفر قوة إحصائية كبيرة. لذا، ينبغي اعتبار مثل هذه الارتباطات على مستوى البقع بمثابة إشارات قابلة للكشف إحصائيًا ولكنها متواضعة بيولوجيًا ومولدة للفرضيات، ويجب أن توجه أحجام التأثير، وليس قيم P وحدها، التفسير البيولوجي. ولا ينبغي مساواة الدلالة الإحصائية في مجموعات البيانات الضخمة على مستوى البقع بتأثيرات بيولوجية قوية.
وفرت التحليلات أحادية الخلية والمكانية سياقاً بيولوجياً لـ PPARG. حيث كان PPARG غنياً في الخلايا البطانية، والخلايا الحولية، والبلعميات/الخلايا الوحيدة، والخلايا السدوية المرتبطة بالأورام، وكان مرتبطاً مكانياً بدرجات الخلايا البطانية والحولية. وأشارت هذه النتائج إلى أن المعلومات الإنذارية التي يحملها PPARG قد تكون مرتبطة بالمكونات الوعائية والمحيطية الدقيقة في الساركوما العظمية. ويتوافق هذا التفسير مع أطالس الساركوما العظمية الحديثة أحادية الخلية والمكانية، ومع أدلة أوسع تشير إلى أن المنافذ المناعية والوعائية والسدوية تشكل عدم التجانس الورمي، والاستجابة للعلاج، والتقدم المرضي25,38,39. وبما أن خلايا الساركوما العظمية الخبيثة قد أعربت عن PPARG في مجموعة فرعية فقط من الخلايا ولم تظهر تعبيراً أعلى بشكل ملحوظ مقارنة بالخلايا الأخرى، فإن التفسير الذي يقتصر على الخلايا الورمية فقط سيكون غير مكتمل. وعلى العكس من ذلك، فإن انخفاض تعبير PPARG على مستوى الكتلة الحيوية الملاحظ في GSE99671 و GSE36001 قد يكون عاكساً جزئياً للاختلافات في تكوين الخلايا السدوية، أو الوعائية، أو نخاع العظم، أو الخلايا المكونة للدهون، أو الخلايا المناعية بين الأنسجة الورمية والطبيعية، بدلاً من كونه انخفاضاً حقيقياً في التعبير داخل خلايا الساركوما العظمية الخبيثة. ونظراً لعدم تعديل نقاء الورم ووفرة أنواع الخلايا بشكل صريح في تحليلات الكتلة الحيوية، فإن هذا الاحتمال لا يمكن استبعاده ويتطلب استقصاءً مستهدفاً.
كانت تحليلات البيئة الدقيقة الوظيفية والمناعية متوافقة مع هذا التفسير. ارتبط PPARG ببصمات الخلايا البلعمية، وخلايا T من نوع CD8، والخلايا التغصنية، والعدلات، وخلايا NK، والخلايا البطانية، كما سلط تحليل GSEA الضوء على المسارات المتعلقة بالالتهاب، و NF-κB، وتأشير JAK-STAT/IL-12، وتنظيم TP53، ونقاط تفتيش تلف DNA. واقترحت هذه النتائج مجتمعة أن PPARG قد يحدد حالة بيئية دقيقة مركبة تشمل الإجهاد المرتبط بالهرم، والارتشاح المناعي، والمكونات الوعائية والسدوية. وكان هذا التفسير مقبولاً من الناحية البيولوجية لأن PPAR-gamma له أدوار مثبتة في تثبيط التنشيط الالتهابي للخلايا البلعمية/الوحيدات، بما في ذلك التأثيرات على البرامج النسخية المرتبطة بـ AP-1 و STAT و NF-κB، ولأن البيئة الدقيقة المناعية للساركوما العظمية تحتوي على عناصر نخاعية ولمفاوية ووعائية ذات وظائف معززة للأورام ومثبطة لها في آن واحد38,40,41. كانت هذه الملاحظات أحادية الخلية والمكانية وصفية ومولدة للفرضيات؛ ولم تثبت بمفردها آليات النيش الوعائي، أو برامج الهرم، أو المسارات الإنذارية.
يجب الإقرار بعدة قيود. أولاً، استند التحليل الإنذاري الرئيسي إلى مجموعة TARGET-OS العامة الاسترجاعية، والتي تميزت بحجم عينة محدود وعدد محدود من الحالات؛ لذا، يجب التحقق من القيمة الإنذارية لـ PPARG في مجموعات مستقلة وفقاً لمبادئ الإبلاغ والتحقق المقبولة لعلامات الأورام42. وبوجه خاص، تم إجراء فحص المرشحين في 85 مريضاً من مجموعة TARGET-OS مع تسجيل 27 حالة وفاة، بينما استخدم تقييم النموذج المعدل سريرياً مجموعة فرعية متداخلة مكونة من 40 مريضاً مع 13 حالة وفاة. وبما أن كلا التحليلين اشتقا من نفس المجموعة المصدرية، فمن المرجح أن يكون التحسن المسجل في مؤشر C-index (من 0.707 إلى 0.829) والانخفاض في AIC متفائلين. لم تتوفر مجموعة بقاء مستقلة للتحقق خارجياً من القيمة الإنذارية لـ PPARG؛ حيث استُخدمت GSE36001 فقط للتحقق من التعبير في الورم مقابل الأنسجة الطبيعية. بالإضافة إلى ذلك، كانت درجة المحور المتكامل (integrated hub score) عبارة عن طريقة ترتيب داخلية استكشافية بدلاً من أن تكون أداة إنذارية معتمدة. ثانياً، استند تحليل النسخ المكاني إلى عينة واحدة من SP_BS3؛ ورغم أن الارتباطات كانت ذات دلالة إحصائية، إلا أن أحجام التأثير كانت صغيرة وتتطلب التحقق من صحتها عبر عينات مكانية إضافية. وبوجه خاص، سيكون زيادة عدد عينات النسخ المكاني من مرضى مستقلين أمراً ضرورياً للحصول على تقديرات أكثر قوة لهذه الارتباطات الضعيفة، كما أن الدراسات القائمة على مجموعات مكانية أكبر تعد ضرورية. يوفر علم النسخ المكاني سياقاً جزيئياً قيماً in situ، ولكن التفسير يظل متأثراً بدقة المنصة، واستراتيجية أخذ العينات، وجودة الأنسجة، وخيارات التكامل الحسابي43. علاوة على ذلك، اعتمد التحليل المكاني على كائن خلوي مفرد عام تمت معالجته مسبقاً بتعليقات توضيحية مبسطة وعلى تسجيل حسابي ونقل للتسميات؛ ونظراً لأحجام التأثير الدنيا، دعمت هذه البيانات تصريحات التموضع الوصفية بدلاً من الادعاءات الميكانيكية حول المناخات الوعائية أو برامج الهرم الخلوي. ثالثاً، استند التحقق التجريبي إلى الخط الخلوي لساركوما العظام 143B وخلايا بانية للعظم بشرية؛ وهناك حاجة إلى خطوط خلوية إضافية لساركوما العظام وعينات سريرية، كما أن التحقق في خط خلوي واحد لا يمكن أن يثبت خصوصية نوع الخلايا، أو الصلة الإنذارية السريرية، أو بيولوجيا الهرم الخلوي. رابعاً، أظهرت هذه الدراسة وجود ارتباط وليس علاقة سببية. ستكون هناك حاجة إلى الاضطراب الوظيفي لـ PPARG في خلايا ساركوما العظام ونماذج البيئة الدقيقة لتحديد ما إذا كان PPARG ينظم بشكل مباشر البرامج المرتبطة بالهرم الخلوي، أو المناخات الوعائية، أو تطور الورم. خامساً، تم تعريف الارتباط بالهرم الخلوي من خلال التداخل مع مجموعة جينات CellAge، ولم يرتبط PPARG بدرجة هرم CellAge الكلية في TARGET-OS. علاوة على ذلك، لم يتم تعديل المقارنات الكلية بين الورم والأنسجة الطبيعية وفقاً لنقاء الورم أو تكوين نوع الخلايا، لذا فإن انخفاض التعبير الملاحظ قد يعكس جزئياً اختلافات في تكوين البيئة الدقيقة بدلاً من التغيرات الذاتية في الخلايا الخبيثة.
يُعد PPARG جيناً مشتقاً من CellAge، ويرتبط انخفاض تعبيره بمعدلات بقاء إجمالية غير مواتية في مجموعة TARGET-OS. ويشير انخفاض تنظيمه في مقارنات الساركوما العظمية الشاملة (bulk osteosarcoma)، إلى جانب إثرائه في المقصورات الوعائية والنخاعية والسدوية، إلى أن مستويات PPARG الشاملة قد تعكس جزئياً تكوين الخلايا في البيئة الدقيقة بدلاً من التعبير الذاتي للخلايا الخبيثة. وتعتبر النتائج المستخلصة من تحليل الخلية الواحدة والتحليل المكاني وصفية، كما أن الارتباط الإنذاري لم يتم التحقق منه بشكل مستقل فيما يتعلق بالبقاء، ويتطلب التحقق من صحته في مجموعة خارجية ذات نتائج بقاء محددة. وترشح هذه النتائج PPARG كعلامة بيولوجية مرشحة للتقييم الإنذاري في الساركوما العظمية وللأبحاث المتعلقة بالبيئات الدقيقة المرتبطة بالشيخوخة، وذلك بانتظار التحقق الخارجي والدراسات الوظيفية. وفي علم النسخ المكاني (spatial transcriptomics)، كانت الارتباطات بين PPARG ودرجات النيش (niche scores) الوعائية أو المرتبطة بالشيخوخة ضعيفة من حيث حجم التأثير، رغم أنها كانت ذات دلالة إحصائية نظراً للعدد الكبير من البقع المكانية، ولذلك يجب تفسيرها بحذر.
الإفصاحات
يصرح المؤلفون بعدم وجود تضارب في المصالح.
مساهمات المؤلفين:
قام Yongwen Li و Wentao Qin بتصور الدراسة وتصميمها. وأجرى Yongwen Li التحليلات المعلوماتية الحيوية والحسابية. وأجرى Tuo Liang التحقق التجريبي. وساهم Rubiao Qiu و Zide Zhang في إعداد الأشكال. كما أشرف Rubiao Qiu و Zide Zhang على الدراسة وراجعوا المخطوطة مراجعة نقدية. وقد راجع جميع المؤلفين المخطوطة النهائية ووافقوا عليها
شكر وتقدير
يعرب المؤلفون عن خالص امتنانهم للباحثين والمساهمين في مشاريع GEO، وTARGET-OS، وUCSC Xena، وCellAge، وMSigDB، وأطلس النسخ المفرد والمكاني لسرطان العظم البشري لتوفيرهم مجموعات البيانات والموارد المتاحة للعموم التي مكنت من إجراء هذه الدراسة. تم دعم هذا العمل من قبل مؤسسة قوانغشي للعلوم الطبيعية (رقم 2023GXNSFAA026111).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| الأجسام المضادة الأولية Anti-GAPDH | Proteintech Group, Wuhan, China | 10494-1-AP | جسم مضاد أولي يستخدم للكشف عن GAPDH كضابط تحميل في تحليل اللطخة الغربية؛ التخفيف 1:5,000. |
| الأجسام المضادة الأولية Anti-PPARG | Proteintech Group, Wuhan, China | 16643-1-AP | جسم مضاد أولي يستخدم للكشف عن بروتين PPARG بواسطة تحليل اللطخة الغربية؛ التخفيف 1:1,000. |
| طقم مقايسة بروتين BCA | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PC0020 | مقايسة لونية تستخدم لتحديد التركيز الكلي للبروتين قبل الفصل الكهربائي. |
| DESeq2 | Bioconductor | Version 1.40.2 | حزمة R تستخدم لتحليل التعبير الجيني التفاضلي لبيانات الترانسكريبتوم القائمة على العد. |
| وسط دلبيكو المعدل (DMEM) | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | 11995 | وسط زراعة أساسي يستخدم للحفاظ على خلايا الساركوما العظمية 143B. |
| كاشف الكشف ECL | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PE0010 | ركيزة ذات تلألؤ كيميائي تستخدم للكشف عن الأجسام المضادة المقترنة بـ HRP في تحليل اللطخة الغربية. |
| مصل جنين البقر (FBS) | Zhejiang Tianhang Biotechnology Co., Ltd. (Sijiqing), Huzhou, Zhejiang, China | 11011-8611 | مكمل مصلي يضاف إلى وسط الزراعة لدعم نمو الخلايا وحيويتها. |
| glmnet | CRAN | Version 4.1-8 | حزمة R تستخدم لتحليلات الانحدار الموقوتة، بما في ذلك نمذجة LASSO والشبكة المرنة (elastic-net). |
| GraphPad Prism | GraphPad Software, San Diego, CA, USA | Version 9.0 | برنامج يستخدم للتحليل الإحصائي، وإنشاء الرسوم البيانية، وتصور البيانات التجريبية. |
| جسم مضاد ثانوي مقترن بـ HRP | Proteintech Group, Wuhan, China | SA00001-2 | جسم مضاد ثانوي مقترن ببيروكسيداز الفجل المستخدم للكشف في اللطخة الغربية؛ التخفيف 1:5,000. |
| خلايا بانية العظم البشرية | Cell Applications, Inc., San Diego, CA, USA | 406-05A | خلايا بانية عظم بشرية أولية تستخدم كنوع خلوي ضابط/مقارن غير خبيث. |
| خط خلايا الساركوما العظمية البشرية 143B | American Type Culture Collection (ATCC), Manassas, VA, USA | CRL-8303 | خط خلايا ساركوما عظمية بشرية يستخدم لتجارب التحقق في المختبر والمقايسات الجزيئية. |
| ImageJ | National Institutes of Health (NIH), USA | Version 1.53 | برنامج تحليل صور يستخدم للتحليل الكمي للصور التجريبية. |
| limma | Bioconductor | Version 3.56.2 | حزمة R تستخدم لتحليل التعبير التفاضلي والاختبار الإحصائي القائم على النموذج الخطي. |
| بنسلين-ستريبتومايسين | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | P1400 | مكمل مضاد حيوي يستخدم في وسط زراعة الخلايا لتقليل التلوث البكتيري. |
| بادئات PPARG وGAPDH | Sangon Biotech (Shanghai) Co., Ltd., Shanghai, China | Custom synthesis; sequences provided in the Methods | بادئات قليلة النوكليوتيد مصنعة خصيصاً تستخدم لتحليل qPCR للتعبير عن PPARG وGAPDH. |
| أغشية PVDF، 0.45 µm | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | YA1701 | أغشية تستخدم لنقل البروتين أثناء تحليل اللطخة الغربية. |
| برنامج R الإحصائي | R Foundation for Statistical Computing, Vienna, Austria | Version 4.3.2 | بيئة حوسبة إحصائية تستخدم للتحليلات المعلوماتية الحيوية، وبناء النماذج، والتصور. |
| randomForestSRC | CRAN | Version 3.2.2 | حزمة R تستخدم لنمذجة الغابة العشوائية للبقاء وتحليل أهمية الميزات. |
| طقم النسخ العكسي | Beyotime Biotech Inc., Shanghai, China | D7168M | يستخدم لتخليق الحمض النووي المتمم (cDNA) من الحمض النووي الريبي (RNA) المعزول قبل تفاعل البلمرة المتسلسل الكمي. |
| محلول RIPA لتحليل الخلايا | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | R0010 | محلول استخلاص البروتين يستخدم لتحليل الخلايا من أجل تحليل اللطخة الغربية. |
| Seurat | Satija Laboratory | Version 5.0.1 | حزمة R تستخدم لمعالجة بيانات تسلسل الحمض النووي الريبي أحادي الخلية، ودمجها، وتجميعها، وتصورها. |
| survival | CRAN | Version 3.5-7 | حزمة R تستخدم لتحليل البقاء، بما في ذلك نمذجة مخاطر كوكس النسبية. |
| مزيج SYBR Green qPCR الرئيسي | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | SR1110 | مزيج رئيسي فلوري يستخدم لتضخيم تفاعل البلمرة المتسلسل الكمي في الوقت الحقيقي. |
| timeROC | CRAN | Version 0.4 | حزمة R تستخدم لإنشاء منحنيات خصائص تشغيل المستقبل المعتمدة على الوقت وحساب الأداء التنبؤي بمرور الوقت. |
| كاشف TRIzol | Invitrogen, Thermo Fisher Scientific, Waltham, MA, USA | 15596026CN | كاشف يستخدم لاستخلاص الحمض النووي الريبي (RNA) الكلي من الخلايا المزروعة. |
| تربسين-EDTA، 0.25% | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | T1300 | كاشف تفكيك الخلايا يستخدم لنقل وحصاد الخلايا الملتصقة. |
المراجع
- Mirabello L, Troisi RJ, Savage SA. Osteosarcoma incidence and survival rates from 1973 to 2004: data from the Surveillance, Epidemiology, and End Results Program. Cancer. 2009;115:1531-1543.
- Bielack SS, et al. Prognostic factors in high-grade osteosarcoma of the extremities or trunk: an analysis of 1,702 patients treated on neoadjuvant cooperative osteosarcoma study group protocols. J Clin Oncol. 2002;20:776-790.
- Isakoff MS, Bielack SS, Meltzer P, Gorlick R. Osteosarcoma: Current Treatment and a Collaborative Pathway to Success. J Clin Oncol. 2015;33:3029-3035.
- Kansara M, Teng MW, Smyth MJ, Thomas DM. Translational biology of osteosarcoma. Nat Rev Cancer. 2014;14:722-735.
- Peng P, et al. Epigenetic remodeling under oxidative stress: Mechanisms driving tumor metastasis. MedComm - Oncology. 2024;3.
- Muñoz-Espín D, Serrano M. Cellular senescence: from physiology to pathology. Nat Rev Mol Cell Biol. 2014;15:482-496.
- Coppé JP, Desprez PY, Krtolica A, Campisi J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annu Rev Pathol. 2010;5:99-118.
- Collado M, Serrano M. Senescence in tumours: evidence from mice and humans. Nat Rev Cancer. 2010;10:51-57.
- Lehrke M, Lazar MA. The many faces of PPARgamma. Cell. 2005;123:993-999.
- Peters JM, Shah YM, Gonzalez FJ. The role of peroxisome proliferator-activated receptors in carcinogenesis and chemoprevention. Nat Rev Cancer. 2012;12:181-195.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets--update. Nucleic Acids Res. 2013;41.
- Ho XD, et al. Whole transcriptome analysis identifies differentially regulated networks between osteosarcoma and normal bone samples. Exp Biol Med (Maywood). 2017;242:1802-1811.
- Love MI, Huber W, Anders S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2. Genome Biol. 2014;15:550.
- Avelar RA, et al. A multidimensional systems biology analysis of cellular senescence in aging and disease. Genome Biol. 2020;21:91.
- Goldman MJ, et al. Visualizing and interpreting cancer genomics data via the Xena platform. Nat Biotechnol. 2020;38:675-678.
- Prentice RL, Zhao S. Regression Models and Multivariate Life Tables. J Am Stat Assoc. 2021;116:1330-1345.
- Heagerty PJ, Lumley T, Pepe MS. Time-dependent ROC curves for censored survival data and a diagnostic marker. Biometrics. 2000;56:337-344.
- Tibshirani R. The lasso method for variable selection in the Cox model. Stat Med. 1997;16:385-395.
- Jaeger BC, et al. OBLIQUE RANDOM SURVIVAL FORESTS. Ann Appl Stat. 2019;13:1847-1883.
- Subramanian A, et al. Gene set enrichment analysis: a knowledge-based approach for interpreting genome-wide expression profiles. Proc Natl Acad Sci U S A. 2005;102:15545-15550.
- Newman AM, et al. Robust enumeration of cell subsets from tissue expression profiles. Nat Methods. 2015;12:453-457.
- Zhou Y, et al. Single-cell RNA landscape of intratumoral heterogeneity and immunosuppressive microenvironment in advanced osteosarcoma. Nat Commun. 2020;11:6322.
- Stuart T, et al. Comprehensive Integration of Single-Cell Data. Cell. 2019;177:1888-1902.e21.
- Hao Y, et al. Integrated analysis of multimodal single-cell data. Cell. 2021;184:3573-3587.e29.
- Zheng X, et al. A single-cell and spatially resolved atlas of human osteosarcomas. J Hematol Oncol. 2024;17:71.
- Ståhl PL, et al. Visualization and analysis of gene expression in tissue sections by spatial transcriptomics. Science. 2016;353:78-82.
- Kresse SH, et al. Integrative analysis reveals relationships of genetic and epigenetic alterations in osteosarcoma. PLoS One. 2012;7.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 2001;25:402-408.
- Schneider CA, Rasband WS, Eliceiri KW. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 2012;9:671-675.
- Gill J, Gorlick R. Advancing therapy for osteosarcoma. Nat Rev Clin Oncol. 2021;18:609-624.
- Sun L, et al. Single-cell RNA sequencing revealed PPARG promoted osteosarcoma progression: based on osteoclast proliferation. Front Immunol. 2024;15:1506225.
- Yuan B, et al. Nuclear receptor modulators inhibit osteosarcoma cell proliferation and tumour growth by regulating the mTOR signaling pathway. Cell Death Dis. 2023;14:51.
- Lu Y, et al. Oridonin exerts anticancer effect on osteosarcoma by activating PPAR-γ and inhibiting Nrf2 pathway. Cell Death Dis. 2018;9:15.
- Gorgoulis V, et al. Cellular Senescence: Defining a Path Forward. Cell. 2019;179:813-827.
- Faget DV, Ren Q, Stewart SA. Unmasking senescence: context-dependent effects of SASP in cancer. Nat Rev Cancer. 2019;19:439-453.
- Hernandez-Segura A, et al. Unmasking Transcriptional Heterogeneity in Senescent Cells. Curr Biol. 2017;27:2652-2660.e4.
- Tian H, et al. Managing the immune microenvironment of osteosarcoma: the outlook for osteosarcoma treatment. Bone Res. 2023;11:11.
- Hanahan D. Hallmarks of Cancer: New Dimensions. Cancer Discov. 2022;12:31-46.
- Ricote M, Li AC, Willson TM, Kelly CJ, Glass CK. The peroxisome proliferator-activated receptor-gamma is a negative regulator of macrophage activation. Nature. 1998;391:79-82.
- Jiang C, Ting AT, Seed B. PPAR-gamma agonists inhibit production of monocyte inflammatory cytokines. Nature. 1998;391:82-86.
- McShane LM, et al. REporting recommendations for tumour MARKer prognostic studies (REMARK). Br J Cancer. 2005;93:387-391.
- Moses L, Pachter L. Publisher Correction: Museum of spatial transcriptomics. Nat Methods. 2022;19:628.