تقيم هذه الدراسة التأثيرات الوقائية لكبسولة Yangjing على خلل تكوين الحيوانات المنوية الناجم عن السيكلوفوسفاميد في الفئران، وتفحص مشاركة مسار تأشير lncRNA NONMMUT031883.2/QKI-5/p38 MAPK.
يتطلب اشتراك JoVE لعرض هذا المحتوى. تسجيل الدخول أو ابدأ نسخة تجريبية مجانية
مقالة بحثية
تخفف كبسولات Yangjing من خلل تكوين الحيوانات المنوية في الفئران عن طريق تثبيط مسار QKI-5/p38 MAPK من خلال زيادة تنظيم IncRNA NONMMUT031883.2
في هذه المقالة
ملخص
الملخص
يعد خلل تكوين الحيوانات المنوية سببًا هامًا للعقم عند الذكور، ويمكن أن يؤدي عقار cyclophosphamide (CP) إلى إضعاف عملية تكوين الحيوانات المنوية من خلال تحفيز الموت الخلوي المبرمج غير الطبيعي للخلايا المنوية. وقد استُخدمت كبسولات Yangjing (YC) لتحسين الوظيفة الإنجابية، إلا أن آليتها الجزيئية الكامنة لا تزال غير واضحة. بحثت هذه الدراسة في التأثيرات الوقائية لـ YC في نموذج فأر مصاب بخلل تكوين الحيوانات المنوية المستحث بواسطة CP، وفي خلايا GC-1 المنوية. وتم تقييم عدد الحيوانات المنوية وحركتها، والخصوبة الذكرية، ومستويات الهرمونات الجنسية في المصل، والتغيرات الهيستوباثولوجية في الخصيتين والبربخ. كما تم تقييم حيوية الخلايا، وإطلاق إنزيم lactate dehydrogenase، والموت الخلوي المبرمج، والبروتينات المرتبطة بالموت الخلوي المبرمج في خلايا GC-1. واستُخدم تفاعل البوليميراز المتسلسل الكمي بالنسخ العكسي (qRT-PCR)، ومقايسات RNA pull-down، والفلورة المناعية، واللطخة الغربية (Western blotting) لفحص lncRNA NONMMUT031883.2، و Quaking-5 (QKI-5)، ومسار إشارات p38 mitogen-activated protein kinase (MAPK). أدت YC، بطريقة تعتمد على الجرعة، إلى تحسين جودة الحيوانات المنوية، ومستويات الهرمونات الجنسية في المصل، ومورفولوجيا الأعضاء التناسلية، والهيستوباثولوجيا الخصوية، والخصوبة في الفئران المعالجة بـ CP. وفي خلايا GC-1، زادت YC من حيوية الخلايا وقللت من التلف الخلوي والموت الخلوي المبرمج. وتفاعل lncRNA NONMMUT031883.2 فيزيائيًا مع QKI-5، وأدى العلاج بـ YC إلى زيادة تعبير lncRNA NONMMUT031883.2 بينما قلل من تعبير QKI-5 وفسفرة p38. كما ثبط العلاج بـ YC الموت الخلوي المبرمج المستحث عن طريق تثبيط (knockdown) lncRNA NONMMUT031883.2 في خلايا GC-1، بينما قلل التعبير المفرط لـ QKI-5 من التأثيرات المضادة للموت الخلوي المبرمج لـ YC. وتشير هذه النتائج إلى أن YC يخفف من خلل تكوين الحيوانات المنوية المستحث بواسطة CP، وأن تأثيراته الوقائية تتم عبر تنظيم مسار lncRNA NONMMUT031883.2/QKI-5/p38 MAPK.
المقدمة
يشير الخلل الوظيفي في تكوين الحيوانات المنوية إلى ضعف إنجابي ناتج عن تشوهات في إنتاج الحيوانات المنوية أو نضجها أو وظيفتها في الجهاز التناسلي الذكري. ويتميز بانخفاض عدد الحيوانات المنوية وحركيتها وزيادة معدل تشوه الحيوانات المنوية1,2. وتعد إمراضية الخلل الوظيفي في تكوين الحيوانات المنوية معقدة وترتبط بعوامل وراثية، واضطرابات المناعة الذاتية، والسموم البيئية، والتلف الناجم عن العلاج الكيميائي، وآفات الأعضاء التناسلية3-5. ويمكن للأدوية الكيميائية مثل cyclophosphamide (CP) أن تسبب تلفاً مباشراً في الأنابيب المنوية في الخصية وتحفز موت الخلايا المبرمج في الخلايا المنوية، مما يساهم في حدوث الخلل الوظيفي في تكوين الحيوانات المنوية لدى الذكور6,7. ويُستخدم حالياً العلاج بالبدائل الهرمونية، والمكملات المضادة للأكسدة، وتقنيات المساعدة على الإنجاب كتدخلات سريرية. ومع ذلك، فإن هذه النهج تظهر فعالية غير متسقة وآثاراً جانبية كبيرة8,9,10. لذا، فإن تحديد تدخلات آمنة وفعالة وتوضيح أهدافها الجزيئية يعد أمراً مهماً سريرياً لتحسين نتائج الخصوبة لدى المرضى الذين يعانون من خلل وظيفي في تكوين الحيوانات المنوية.
أظهرت الأدوية العشبية الصينية إمكانات في حماية وظائف التكاثر لدى الذكور وعلاج خلل تكوين النطاف بفضل خصائصها متعددة الأهداف وسميتها المنخفضة نسبيًا11,12. وتُعد كبسولة Yangjing (YC) دواءً صينيًا تقليديًا مسجلاً يتكون من Rehmannia glutinosa وEpimedium والمشيمة وPolygonatum sibiricum وAngelica sinensis وأعشاب صينية أخرى؛ حيث تُستخدم لتقوية الكلى والجوهر، وتغذية الدم والنخاع، وتنظيم الوظيفة التناسلية13. وقد أظهرت الدراسات السابقة أن YC يمكن أن تنظم مستويات الهرمونات الجنسية في الحيوانات الذكرية، وتحسن جودة الحيوانات المنوية، وتصلح تلف أنسجة الخصية، وتحمي من الإصابات التناسلية الناجمة عن العوامل الكيميائية14,15. وتشكل الخلايا المنوية البدائية أساس عملية تكوين النطاف، ويعد الموت الخلوي المبرمج غير الطبيعي لهذه الخلايا حدثًا مركزيًا في تطور خلل تكوين النطاف16. كما أفادت التقارير بأن YC تعمل على تحسين حيوية الخلايا المنوية البدائية، وزيادة نسبة الخلايا في طور S، وتثبيط الموت الخلوي المبرمج17. ومع ذلك، لا تزال تأثيراتها الوقائية وآلياتها الجزيئية المحددة في خلل تكوين النطاف الناجم عن CP غير واضحة.
تعد الحمضيات النووية الريبوزية غير المشفرة الطويلة (lncRNAs) جزيئات RNA يزيد طولها عن 200 نيوكليوتيد وتفتقر إلى القدرة على تشفير البروتين18. يمكن لـ lncRNAs تنظيم التعبير الجيني من خلال آليات تشمل إسكات الكروموسومات، وتعديل الكروماتين، والبصمة الجينية، والتنشيط النسخي19,20. يشارك البروتين الرابط لـ RNA المسمى Quaking-5 (QKI-5) في العمليات الفسيولوجية والمرضية، بما في ذلك تكاثر الخلايا والموت الخلوي المبرمج، وذلك عن طريق تنظيم الربط البديل للجينات المصب21. يشارك مسار p38 mitogen-activated protein kinase (MAPK) في تنظيم الموت الخلوي المبرمج ويلعب أيضاً دوراً هاماً في خصوبة الذكور وتطور الخصية22,23. أظهرت دراسة سابقة أن الإفراط في تعبير QKI-5 ينشط مسار p38 MAPK في خلايا سرطان الخلايا الكبدية24. بالإضافة إلى ذلك، تبين أن lncRNA NONMMUT074098.2 يرتبط بـ QKI-5 في الخلايا الجرثومية المنوية، بينما أدى تثبيط QKI-5 إلى تثبيط مسار p38 MAPK وتقليل الموت الخلوي المبرمج للخلايا الجرثومية المنوية25. استخدمت هذه الدراسة نموذج فأر مصاب بخلل في تكوين الحيوانات المنوية مستحث بواسطة CP للبحث فيما إذا كان YC ينظم تعبير lncRNA NONMMUT031883.2 ومحور إشارات QKI-5/p38 MAPK، مما يقلل من الموت الخلوي المبرمج غير الطبيعي للخلايا الجرثومية المنوية ويخفف من خلل تكوين الحيوانات المنوية المستحث بواسطة CP (الشكل 1). وكان الهدف هو توضيح الآلية الجزيئية الكامنة وراء التأثيرات الوقائية لـ YC على تكوين الحيوانات المنوية وتوسيع فهم دوره الصيدلاني في حماية الوظيفة الإنجابية للذكور.
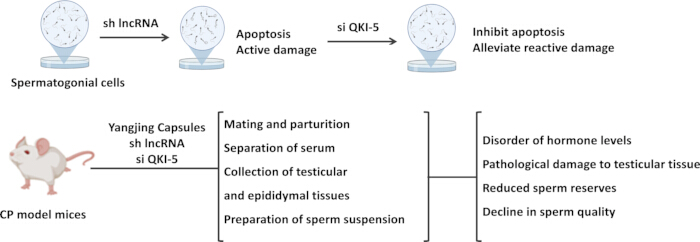
الشكل 1: مخطط تخطيطي للتصميم التجريبي. يلخص اللوح العلوي التجارب التي أجريت in vitro في خلايا GC-1 المنوية. تم استخدام تثبيط lncRNA NONMMUT031883.2 لتحفيز الموت الخلوي المبرمج والتلف الخلوي، يليه تثبيط QKI-5 لتقييم تأثيراته على الموت الخلوي المبرمج وإصابة الخلايا. ويلخص اللوح السفلي التجارب التي أجريت in vivo في نماذج فئران تعاني من خلل في تكوين الحيوانات المنوية ناتج عن السيكلوفوسفاميد (CP). تلقت الفئران علاجاً بكبسولات Yangjing و/أو تدخلاً باستخدام lncRNA NONMMUT031883.2 أو QKI-5. بعد ذلك، تم تقييم الخصوبة، ومستويات الهرمونات في المصل، وأنسجة الخصية والبربخ، ومعلق الحيوانات المنوية، ومخزون الحيوانات المنوية، وجودة الحيوانات المنوية، والتلف النسيجي المرضي للخصية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
البروتوكول
أُجريت جميع تجارب الحيوانات وفقًا لإرشادات ARRIVE والدليل الخاص بالرعاية والاستخدام للحيوانات المعملية الصادر عن المعاهد الوطنية للصحة. وقد تم مراجعة جميع البروتوكولات التجريبية والموافقة عليها من قبل لجنة أخلاقيات الحيوان في جامعة جنوب شرق (رقم الموافقة: 20230216022).
١. تحضير مصل يحتوي على YC
تم فتح كبسولتين من كبسولات يانغجينغ (YC؛ 0,5 غرام/كبسولة)، ووزن 0,8 غرام من محتويات الكبسولة. أُضيف محلول ملحي عادي حتى حجم نهائي قدره 10 مل، وتم خلط المزيج جيدًا باستخدام جهاز الاهتزاز الدوامي لإعداد معلق بتركيز 80 ملغم/مل. تم تربية ذكور فئران BALB/c الخالية من مسببات الأمراض المحددة، بوزن 22–25 غرامًا وبعمر 8 أسابيع، في 22 °C وفي رطوبة تتراوح بين 55% و60% ضمن دورة ضوئية/مظلمة مدتها 12 ساعة، مع توفير الطعام والماء حسب الرغبةبعد أسبوع من التأقلم، تلقّت الفئران مستخلص YC عن طريق التجريع الفموي بجرعة 800 مغ/كغ من وزن الجسم في حجم 10 مل/كغ مرة واحدة يوميًا ولمدة 5 أيام متتالية. بعد ساعتين من الجرعة الأخيرة، جُرّعت الفئران بالبنتوباربيتال الصوديوم 1% عن طريق الحقن البطني، وجمعت عينات الدم لإعداد مصل يحتوي على YC. ثم أُوقف تنشيط المصل عند 56 °C لمدة 30 دقيقة، يُرشّح عبر مِرشّح 0.22 µm غشاء، ويخزن عند −80 °C حتى الاستخدام.
٢. زراعة الخلايا والنقل الجيني
تم الحفاظ على خلايا الحيوانات المنوية الغerminalية للفأر (GC-1) في وسط DMEM يحتوي على ١٪ بنسلين-ستربتوميسين و١٠٪ مصل بقري جنيني. تم الحفاظ على جميع الزراعات عند ٣٧ °س في جو يحتوي على ٥٪ CO₂ (بالحجم/بالحجم).
تم تصنيع وتجميع RNA مزدوج موجه ضد الـlncRNA (sh-lncRNA)، وبلازميد يُعبر عن زيادة التعبير الجيني لـQKI-5 (OE-QKI-5)، وRNA متدخل صغير موجه ضد QKI-5 (si-QKI-5)، بالإضافة إلى الضوابط السلبية المقابلة لها (sh-NC، OE-NC، وsi-NC). تم إدخال الشظايا sh-lncRNA أو sh-NC، si-QKI-5 أو si-NC، أو OE-QKI-5 أو OE-NC إلى خلايا GC-1 وفقًا لتعليمات كاشف الإدخال. وبعد حضن الخلايا لمدة 48 ساعة، تم تقييم كفاءة الإدخال عن طريق قياس التعبير عن الـlncRNA NONMMUT031883.2 أو التعبير عن QKI-5.
بالنسبة لمجموعة sh-lncRNA + si-QKI-5 + etoposide، تم إجراء عملية انتقال للخلايا GC-1 باستخدام sh-lncRNA وsi-QKI-5، ثم عُوملت بـ 100 µM من etoposide لمدة 12 ساعة26. وبالنسبة للتجارب اللاحقة لقياس قابلية البقاء الخلوي، تم زراعة الخلايا GC-1 في وسط مغذٍ مُكمَّل بـ 5% أو 10% أو 20% من المصل المحتوي على YC، وسُميت هذه المجموعات على التوالي بـ مجموعة YC بجرعة منخفضة (L-YC)، ومجموعة YC بجرعة متوسطة (M-YC)، ومجموعة YC بجرعة عالية (H-YC). وقد تم تحديد تراكيز المصل المحتوي على YC (5%، 10%، و20% YC) بناءً على نتائج تجارب أولية لتدرج التركيز. وبالنسبة لمجموعتي sh-lncRNA + H-YC + OE-NC وsh-lncRNA + H-YC + OE-QKI-5، تم انتقال الخلايا GC-1 باستخدام sh-lncRNA مع OE-NC أو sh-lncRNA مع OE-QKI-5 لمدة 48 ساعة، ثم عُرضت للعلاج بـ 20% من المصل المحتوي على YC لمدة 24 ساعة.
3. اختبار كيت عد الخلايا-8
تم زراعة خلايا GC-1 في أطباق ذات 96 بئرًا بتركيز 5 × 10³ خلايا/بئر وتربيت لمدة 24 ساعة. بعد التصاق الخلايا، استُبدل الوسط الأصلي بـ 100 µL من وسط كامل مكمل بمصل يحتوي على YC، وحُضنت الخلايا لمدة 6 أو 12 أو 24 ساعة. بعد الحضن، 10 µL تم إضافة كاشف حزمة عد الخلايا-8 إلى كل بئر، وتم حضن الخلايا عند 37 °C في الظلام لمدة ساعتين. قُيس الامتصاص عند 450 نانومتر باستخدام قارئ الميكروبيت.
٤. فحص ديهايدروجيناز اللاكتات
بعد التحوير الوراثي باستخدام sh-NC أو sh-lncRNA لمدة ٤٨ ساعة، تم جمع وسط زراعة الخلايا GC-1، ثم تم الحصول على السوبرناتنت بالطرد المركزي. وفقًا لتعليمات كيت فحص ديهايدروجيناز اللاكتات، تم خلط السوبرناتنت بلطف مع محلول الكشف العامل ونقله إلى لوحة ذات ٩٦ بئرًا. تُحفَظ اللوحة عند ٢٥ °م في الظلام لمدة ٣٠ دقيقة. تم قياس الامتصاصية عند الطول الموجي ٤٩٠ نانومتر باستخدام قارئ الميكروبلت، وتم حساب إطلاق ديهايدروجيناز اللاكتات لتقييم مدى تلف الخلايا.
5. التلوين بـ كالسين أ.م / بروبيديوم يوديد
بعد مرور 48 ساعة على التحوير الوراثي باستخدام sh-NC أو sh-lncRNA، تم تقييم بقاء خلايا GC-1 باستخدام صبغة كالسين أم/بروبيديوم يوديد (PI). زرعت الخلايا في أطباق ذات 12 بئرًا بتركيز 5 × 10⁴ خلايا/بئر وتم زراعتها حتى وصلت إلى تراص بنسبة 60٪–70٪. شُطبت الخلايا بلطف باستخدام محلول ملحي مخزن بالفوسفات، و 500 µL أُضيف محلول صبغة كالسين أ.م/آي.بي إلى كل بئر. ثُمَّ حُضنت الخلايا عند 37 °C في الظلام لمدة 30 دقيقة، ثم فُحصت تحت المجهر الفلوري. تم عد الخلايا الحية والميتة باستخدام برنامج تحليل الصور، وتم حساب نسبة الخلايا الناجية.
6. قياس التدفق الخلوي
تم جمع خلايا GC-1 بالطرد المركزي وشُطبت بلطف باستخدام محلول ملحي مُخَصَّب بالفوسفات. أُعيد تعليق كريّة الخلايا في 500 µL من عازل الربط بكثافة 5 × 10⁵ خلايا/مل. ثم أُضيف أنكسين V-APC وPI بتركيز 5 µL كلٍّ، وتم خلط المعلق بشكل جيد ومن ثم حضنه عند 25 °C في الظلام لمدة 10 دقائق. تم تحليل موت الخلايا المبرمج باستخدام مطيافية تدفق الخلايا وبأطوال موجية للإثارة/الانبعاث 633/660 نانومتر لـ APC و488/630 نانومتر لـ PI. تم تقييم معدل موت الخلايا المبرمج باستخدام برنامج تحليل مطيافية تدفق الخلايا.
7. فحص نشاط الكاسباز-3
بعد العلاجات المحددة، تقريبًا 1 × 10⁶ تم جمع خلايا GC-1، وشُطبت، ثم أُعيد تعليقها في محلول ملحي مخزّن بالفوسفات. خُلطت الخلايا مع 100 µL من المحلول الثاني من مجموعة كشف نشاط الكاسباز-3 وتم تحليل العينات على الجليد لمدة 15 دقيقة. بعد الطرد المركزي، 50 µL تم جمع السوبرناتان من المعلق المحفور وخلطه مع 40 µL من المحلول الأول و 10 µL من المحلول الثالث. تُحفَظ الخلطة عند درجة حرارة 37 °C لمدة ساعتين. قُيست الامتصاصية عند الطول الموجي 405 نانومتر باستخدام قارئ الميكروبيت، وتم تقييم نشاط الكاسباز-3 وفقًا لتعليمات العلبة المتوفرة.
٨. فحص سحب الحمض النووي الريبي
تم تصنيع الخيوط المحسوسة وعكس المحسوسة للحمض النووي الريبي طويل غير المشفر NONMMUT031883.2 وفقًا للتسلسل المقابل وتسميتها بالبيوتين. تم تحليل الخلايا في عازل تحليل الخلايا للترسيب المناعي على الجليد لمدة ٣٠ دقيقة، وتم جمع المعلق المحتوي على البروتين بالطرد المركزي. تم غسل حبيبات المغناطيسية المغطاة بالستربتavidين ثلاث مرات بعازل ارتباط الحمض النووي الريبي، ثم حضنت في عازل ارتباط يحتوي على ١٪ ألبومين مصل البقر لمدة ٣٠ دقيقة.
تم مزج الخرز المعالج مسبقًا مع المجسات الموسومة بالبيوتين واحتضانها عند 25 °C لمدة 30 دقيقة. وأُزيلت المجسات غير المرتبطة بواسطة الفصل المغناطيسي. ثم أُضيف المطافي المستخلص من الخلايا، واحتضن المزيج عند 4 °C لمدة 4 ساعات لتكوين معقدات الخرز المغناطيسي-الحمض النووي الريبي-البروتين. وغُسلت الخرز المغناطيسية ثلاث مرات باستخدام محلول الغسل لإزالة البروتينات المرتبطة غير النوعية. وأُزيل محلول الغسل بواسطة الفصل المغناطيسي، ثم أُضيف محلول التحميل العينات 2× SDS. سُخنت العينات عند 95 °C لمدة 10 دقائق، وجُمع المطافي بواسطة الفصل المغناطيسي لتحليله اللاحق بالبلوت الغربي.
٩. بناء نموذج فأر لخلل التكوين المنوي
بعد ٥ أيام من التأقلم، تلقّى ذكور الفئران من سلالة BALB/c الخالية من مسببات الأمراض المحددة، والتي تزن ٢٢–٢٥ غرامًا ويبلغ عمرها ٨ أسابيع، عقار السيكلوفوسفاميد (CP) عن طريق الحقن داخل الصفاق بجرعة ٥٠ ملغ/كغ مرة واحدة يوميًا على مدى ٧ أيام لإنشاء نموذج لخلل التكوين المنوي14,27. ثم قُسّمت الفئران الناجحة في النموذج عشوائيًا باستخدام جدول الأرقام العشوائية إلى المجموعات التالية: CP، وYC بجرعة ٢٠٠ ملغ/كغ، وYC بجرعة ٤٠٠ ملغ/كغ، وYC بجرعة ٨٠٠ ملغ/كغ، وYC بجرعة ٨٠٠ ملغ/كغ + sh-NC، وYC بجرعة ٨٠٠ ملغ/كغ + sh-lncRNA، بواقع ستة فئران في كل مجموعة.
تلقّت الفئران في المجموعات المعالجة بـ YC الجرعة المقابلة من YC عن طريق التغذية عن طريق المعدة مرة واحدة يوميًا على مدى 30 يومًا13. بالنسبة لمجموعتي 800 ملغ/كغ يو سي + ش-إن سي و800 ملغ/كغ يو سي + ش-آر إن إيه لnc، بعد إتمام نجاح إنشاء النموذج، تم تهوية الفئران بـ 2% من الآيسوفلورين. وبعد التأكد من عدم وجود انعكاس سحب القدم لدى كل فأر واستقرار معدل التنفس، تم حلق موقع الجراحة وتعقيمه باستخدام اليود البوفيدون. وفي ظل ظروف معقمة، تم إجراء شق منتصف بطني عبر الجلد وجدار الجسم أمام الأعضاء التناسلية. ثم تم التعرض للخصية عن طريق تحريك وسادة الدهون الوبائية بعناية، مع اتخاذ الحيطة لتجنب إصابة الأوعية الدموية. وباستخدام جهاز التحكم الدقيق، تم تصور الأنابيب المنوية، و 1 µL من علقة الأدينوفايرس (1 × 10¹⁰ تم حقن (وحدة تكاثر/مل) ببطء باستخدام إبرة الحقن المجهري28تُرك الإبرة في مكانها لمدة 5 دقائق بعد الحقن، ثم سُحبت ببطء، وتم إيقاف النزيف باستخدام قطنة معقمة. ثم أُجريت نفس الإجرائية على الخصية المقابلة. بعد ذلك، أُغلق الشق بالخياطة، وسُمح للفئران بالتعافي على وسادة تسخين بعد العملية. وتلقّت فئران المجموعة الضابطة حجمًا مساويًا من محلول الملح الفسيولوجي عن طريق التغذية أنفية وحقن يوميًا.
10. تقييم الخصوبة
بعد انتهاء إعطاء الدواء، تم تزاوج الفئران الذكور في كل مجموعة بحرية مع فئران أنثى من سلالة BALB/c بنسبة 1:2 لمدة 7 أيام. تم مراقبة وتسجيل تكوّن السدادة المهبلية لدى الفئران الإناث يوميًا. وبعد التأكد من التزاوج الناجح، تم إزالة الفئران الذكور، وتم حجز الفئران الإناث بشكل منفصل حتى الولادة الطبيعية. تم الحصول على تسع فئران حبلى لكل مجموعة وتم إدراجها في التحليل. تم تسجيل متوسط عدد الصغار في كل وِلادة لتقييم خصوبة الذكور في كل مجموعة.
في نهاية الفترة التجريبية، تم إعدام الفئران عن طريق الحقن البطني بـ 100 ملغ/كغ من البابيتورات الصوديوم. وقد وافقت لجنة أخلاقيات الحيوان في جامعة جنوب شرق على هذه الطريقة في إعدام الحيوانات (رقم الموافقة: 20230216022). تم فصل الخصيتين والبربخين بعناية، ثم تم تصويرهما ووزنهما. وتم حساب دلائل الخصية والبربخ كنسبة وزن العضو إلى وزن الجسم. تم جمع بروبخ واحد من كل فأر، وقطع إلى قطع صغيرة، ووضع في 1 مل من محلول ملحي مخفف بالفوسفات المحمّى مسبقًا (37 °C، واحتضن لمدة 20 دقيقة للسماح للحيوانات المنوية بالسباحة خارجًا29تم خلط عينة الحيوانات المنوية بلطف، و 10 µL ووُضِعَ جزء من معلق الحيوانات المنوية على لوحة عد خلايا دم مسخنة مسبقًا. وجرى عد الحيوانات المنوية يدويًا باستخدام المجهر الضوئي عند تكبير 200× تَكبير، وتم التعبير عن النتائج كـ 106/ل. علاوةً على ذلك، تم حساب النسبة المئوية للحيوانات المنوية المتحركة تقدميًا بالنسبة إلى العدد الكلي للحيوانات المنوية باعتبارها نسبة حيوية الحيوانات المنوية13.
11. تحديد مستويات الهرمونات الجنسية
تم جمع الدم من الوريد المداري للفئران في كل مجموعة وترك عند 25 °C لمدة 30 دقيقة. تم جمع المصل بالطرد المركزي عند 3,000 × g لمدة 10 دقائق30. قُيست مستويات التستوستيرون، والهرمون الملوتن (LH)، والهرمون المحفز للجريب (FSH) في المصل باستخدام أطقم اختبار المناعي المرتبط بالإنزيمات المقابلة.
١٢. فحص ثبات الحمض النووي الريبي
زرعت خلايا GC-1 في أطباق زراعة ذات ٩٦ بئرًا، ثم أُدخل إليها si-QKI-5 أو si-NC، وثُقفت لمدة ٤٨ ساعة. بعد ذلك، أُضيف أكتينوميسين D بتركيز ٥ µg/mL، وجمعت الخلايا عند الزمن ٠، ٣، ٦، و٩ ساعات. تم عزل الحمض النووي الريبي الكلي، وتم تحديد المستوى النسبي للحمض النووي الريبي غير المشفر الطويل NONMMUT031883.2 باستخدام تفاعل البوليميراز المتسلسل الكمي العكسي بعد التحويل العكسي. وتم حساب المستوى النسبي للحمض النووي الريبي عند كل نقطة زمنية باستخدام المستوى التعبيري عند الزمن ٠ ساعة كمرجع بنسبة ١٠٠٪.
13. تفاعل البوليميراز المتسلسل العكسي الكمي
غُسِلت خلايا GC-1 ونُسج الخصية الفأرية بوساطة محلول ملحي مُخَصَّب بالفوسفات وتم تحليلها لعزل إجمالي الحمض النووي الريبي. تم توليد الحمض النووي المتمم باستخدام إنزيم النسخ العكسي AMV. أُجري تضخيم تفاعل سلسلة البوليميراز باستخدام نظام تفاعل سلسلة البوليميراز المتضخم في الوقت الحقيقي وكيت تفاعل سلسلة البوليميراز الكمي، مع استخدام الحمض النووي المتمم كقالب للتضخيم. استُخدم U6 كمرجع داخلي للحمض النووي الريبي غير المشفر الطويل NONMMUT031883.2، واستُخدم GAPDH كمرجع داخلي للـ مصدر داخلي لـ QKI-5. تم حساب التعبير النسبي للجين المستهدف باستخدام الطريقة 2−ΔΔ.Ct طريقة25تم عزل الـRNA أيضًا بشكل منفصل من الكسور السيتوبلازمية والنواة لتحديد التوزيع الفرعي للخلية للـlncRNA NONMMUT031883.2. ترد تسلسلات البدائل في الجدول 1.
| جين | البادئ الأمامي (من 5' إلى 3') | المرناة العكسية (من 5' إلى 3') |
| QKI-5 | CTGTCATGCCAAACGGAAC | جاتجغكاحغكجاتاتغتجت |
| GAPDH | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| lncRNA NONMMUT031883.2 | CCACTGTGGCACATTGAAGTA | TTAAGTTAATGGGTGCTGTGTT |
| RNA يو6 | CTCGCTTCGGCAGCACA | AACGCTTCACGAATTTGCGT |
الجدول 1: تسلسلات البدائل المستخدمة في تفاعل البوليميراز المتسلسل العكسي الكمي. تُسرد تسلسلات البدائل الأمامية والعكسية بالاتجاه 5′–3′ لكل من الـlncRNA NONMMUT031883.2، وQKI-5، وU6، وGAPDH.
14. صبغ الهيماتوكسيلين والإيوزين
غُمرت أنسجة الخصية والبربخ للفأر في فورمالدهيد 4% وثُبتت عند 4 °C لمدة 24 ساعة. بعد الشطف ب محلول ملحي مخزن بالفوسفات، خضعت الأنسجة للجفاف باستخدام سلسلة تدريجية من الإيثانول، ثم أُدرجت في البارافين وقُطعت بسمك 5 µم. سُخنت الشرائح عند 60 °C لمدة 60 دقيقة، ثم أُزيل منها الشمع باستخدام الزايلين لمدة 30 دقيقة.
بعد الترطيب من خلال سلسلة كحول إيثيلي متدرجة، صبغت الأقسام بهيماتوكسيلين لمدة 5 دقائق، وعولجت ب محلول التمايز حمض الهيدروكلوريك-الكحول الإيثيلي لمدة 10 ثوانٍ، ثم غسلت بماء الصنبور لإعادة التزرق، وصُبغت بـ 1% إيوسين لمدة دقيقتين. بعد ذلك، جُففت الأقسام في كحول إيثيلي 95% وكحول إيثيلي مطلق، ونُظفت في الزايلين لمدة 30 دقيقة. وبعد التجفيف الهوائي، وُضعت الأقسام باستخدام صمغ متعادل. لُوحظت التغيرات النسيجية في الخصيتين والبربخ تحت المجهر.
15. التألق المناعي
تم إزالة الشمع من أقسام الخصية الفأرية الشمعية وترطيبها من خلال سلسلة كحولية متدرجة، تليها استرجاع المستضد بوساطة المايكروويف في محلول السترات عند درجة حموضة 6.0. بعد التبريد الطبيعي حتى درجة حرارة الغرفة، تم حضن الأقسام مع 0.3% تريتون X-100 لمدة 10 دقائق. ثم تم منع الأقسام باستخدام 5% ألبومين المصل البقري عند 25 °C لمدة 60 دقيقة، وشُطبت بمحلول ملحي مخفف بالفوسفات، وحُضنت طوال الليل عند 4 °C مع جسم مضاد أولي ضد Ki67. في اليوم التالي، تم تطبيق جسم مضاد ثانوي مناعي غلوبولين G موسوم بعامل متألق، وحُضنت الأقسام عند 37 °C في الظلام لمدة 60 دقيقة. بعد الشطف بمحلول ملحي مخفف بالفوسفات، تم صبغ الأقسام تنازلياً بـ DAPI لمدة 10 دقائق ومشاهدتها تحت المجهر المتألق. تم تحليل شدة التألق باستخدام برنامج تحليل الصور.
لإجراء تلوين المناعة بال fluorescein للخلايا GC-1، زُرعت الخلايا في أطباق 12 بئرًا بتركيز 1 × 10⁵ خلية/بئر وحُضنت لمدة 24 ساعة. ثُبتت الخلايا باستخدام 4% بارافورمالدهيد لمدة 30 دقيقة، ثم نُفّذت عملية النفاذية باستخدام 0.3% تريتون X-100 لمدة 10 دقائق، تليها خطوة الحجب باستخدام 5% ألبومين مصل البقر، ثم حُضنت الخلايا طوال الليل عند 4 °م مع الجسم المضاد الأولي ضد QKI-5. نُفذت الخطوات المتبقية كما وُصف بالنسبة لأقسام نسيج الخصية.
16. صبغة TUNEL
تم إزالة الشمع من أقسام الخصية الفأرية الشمعية، وتُرطيبها عبر سلسلة كحولية متباعدة، ثم تُحضنت مع 0.1% من Triton X-100 لمدة 5 دقائق لزيادة نفاذية الغشاء الخلوي. طُبّق محلول عمل بروتينيز K بتركيز 20 µg/mL بدون إنزيم DNase بشكل موحد على الأقسام، ثم حُضنت الأقسام عند 37 °C لمدة 15 دقيقة. أُضيف محلول الكشف عن TUNEL، وحُضنت الأقسام عند 37 °C في الظلام لمدة 90 دقيقة. بعد الحضن مع DAPI لمدة 10 دقائق، طُبّق وسط تثبيت مقاوم للبهتان، وتم فحص نسيج الخصية تحت المجهر الفلوري.
تم زرع خلايا GC-1 في أطباق ذات 12 بئر وتثبيتها باستخدام Paraformaldehyde بنسبة 4% لمدة 30 دقيقة. بعد التخلخل باستخدام Triton X-100 بنسبة 0.1% لمدة 5 دقائق، طُبّق محلول الكشف عن TUNEL على الخلايا، تبعاً لذلك التحفيظ في الظلام لمدة 60 دقيقة. ثم صُبغت الخلايا بـ DAPI لمدة 10 دقائق ورُصدت تحت المجهر الفلوري.
17. التحليل بالمناعة الغربية
تم تحليل أنسجة الخصية للفأر والخلايا GC-1 في محلول تحليل الخلايا للترسيب المناعي على الجليد لمدة 30 دقيقة، وتم تفتيتها باستخدام الموجات فوق الصوتية. وبعد الطرد المركزي، جُمع المحلول العلوي المحتوي على البروتين، وحُدد تركيز البروتين باستخدام مجموعة كشف حمض البيسينكونينيك. ثم خُلط المحلول العلوي البروتيني مع محلول التحميل SDS وسُخّن في ماء مغلي لمدة 10 دقائق. وبعد الفصل بالهجرة الكهربائية على هلام، نُقلت البروتينات إلى أغشية بولي فلوريد الإيثيلين ثنائي البولي فينيليدين، وحُجبت باستخدام 5% ألبومين مصل البقر لمدة ساعتين31.
تم حضن الأغشية طوال الليل عند 4 °C مع الأجسام المضادة الأولية ضد الكاسباز-3 المنشّق (1:500)، وBcl-2 (1:1000)، والكاسباز-3 (1:2000)، وBax (1:500)، وQKI-5 (1:1000)، وp38 المفسفر (1:1000)، أو p38 (1:500). في اليوم التالي، شُطبت الأغشية باستخدام محلول ملحي مخزّن بالترس يحتوي على تويين 20، ثم حُضنت مع الغلوبيولين المناعي المضاد للأرنب من مصدر الماعز بنسبة 1:10000 لمدة ساعتين عند 25 °C. تم تطبيق محلول العمل للانبعاث الكيميائي المقوى على سطح الغشاء، وصُورت الحزم البروتينية باستخدام نظام تصوير الجل. جُرى تحليل شدة الحزم باستخدام برنامج تحليل الصور، وتم تسوية التعبير النسبي عن البروتين بالنسبة إلى GAPDH (1:3000).
تم استخدام السيكلوهكسيميد بتركيز 50 µg/mL لتثبيط تخليق البروتين. ولتحديد عمر نصف QKI-5، جُمعت الخلايا عند الزمن 0، 3، 6، و9 ساعة، ثم قُيّمت مستويات بروتين QKI-5 لاحقًا بواسطة التحليل بالبلوت الغربي25.
18. التحليل الإحصائي
تم تحليل جميع البيانات إحصائيًا ورسمها باستخدام برامج إحصائية ورسم بياني وتحليل الصور. تم استخدام اختبار شابيرو-ويلك لتقييم طبيعة توزيع البيانات. تُعرض البيانات التجريبية كمتوسط ± الانحراف المعياري. تم استخدام تحليل التباين الأحادي الاتجاه لتقييم الفروق بين المجموعات. واستُخدم اختبار LSD-t للمقارنات الزوجية اللاحقة عندما كانت التباينات متجانسة، في حين استُخدم اختبار دونيت T3 عندما كانت التباينات غير متجانسة. واعتُبرت القيمة p < 0.05 ذات دلالة إحصائية.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
النتائج
تثبيط lncRNA NONMMUT031883.2 يحفز موت الخلايا المبرمج في الخلايا المكونة للنطاف
تم ترانزفكشن خلايا GC-1 باستخدام sh-lncRNA لتثبيط تعبير lncRNA NONMMUT031883.2. ومقارنة بالخلايا التي تم ترانزفكشنها بـ sh-NC، انخفض المستوى النسخي لـ lncRNA NONMMUT031883.2 بشكل ملحوظ بعد ترانزفكشن sh-lncRNA، مما يؤكد نجاح عملية التثبيط (الشكل 2A). وعقب تثبيط lncRNA NONMMUT031883.2، انخفضت حيوية خلايا GC-1 بشكل كبير (الشكل 2B)، بينما زاد إطلاق LDH بشكل ملحوظ، ...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المناقشة
يعتبر خلل تكوين الحيوانات المنوية المكتسب الناجم عن العلاج الكيميائي سبباً هاماً للعقم عند الذكور32,33,34. ومع ذلك، لا تزال الآليات الجزيئية المحددة غير مفهومة بشكل كامل. تُظهر نتائج هذه الدراسة أن كبسولات Yangjing (YC) تحسن بشكل يعتمد على الجرعة من اضطرابات الهرمونات الجنسية، والتلف النسيجي المرضي في الخصية، وضعف الخصوبة الناجم عن السيكلوفوسفاميد (CP) في ذكور الفئران. وقد ارتبطت هذه التحسينات بزيادة تنظيم lncRNA NONMMUT031883.2...
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
الإفصاحات
يصرح المؤلفون بعدم وجود أي تضارب في المصالح، سواء كانت مالية أو غير مالية.
شكر وتقدير
تم دعم هذا العمل من قبل المؤسسة الوطنية للعلوم الطبيعية في الصين (منحة رقم 82374257)، والدفعة الرابعة من برنامج تدريب المواهب الأكاديمية المتميزة في مستشفى مقاطعة جيانغسو للطب الصيني (منحة رقم k2026yrc74)، ومشاريع البحث العلمي للطب الصيني التقليدي والطب المتكامل الصيني والغربي في مقاطعة جيانغسو (منحة رقم CYTF2026019).
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| أكتينومايسين د (Actinomycin D) | MedChemExpress، مونماوث جنكشن، نيوجيرسي، الولايات المتحدة الأمريكية | HY-17559 | مثبط نسخ يُستخدم في فحوصات استقرار الحمض النووي الريبوزي (RNA) |
| إنزيم النسخ العكسي لفيروس لويكوز الدواجن (AMV) | Takara، طوكيو، اليابان | 2621 | إنزيم تخليق الحمض النووي الريبوزي منقوص الأكسجين المكمل |
| طقم كشف Annexin V-APC/PI | BioLab Technology، بكين، الصين | KFS191 | طقم لتحليل الموت الخلوي المبرمج باستخدام قياس التدفق الخلوي |
| وسط تثبيت مضاد للتلاشي | MedChemExpress، مونماوث جانكشن، نيوجيرسي، الولايات المتحدة الأمريكية | HY-K1042 | وسط التثبيت للحفاظ على الفلورة |
| الأجسام المضادة الأولية لـ Bax | Affinity Biosciences، أوهايو، الولايات المتحدة الأمريكية | AF0120 | الجسم المضاد الأولي للكشف عن Bax |
| طقم BCA | ماكلين، شنغهاي، الصين | B917925 | طقم تقدير تركيز البروتين |
| الأجسام المضادة الأولية لـ Bcl-2 | Affinity Biosciences، أوهايو، الولايات المتحدة الأمريكية | AF0769 | الأجسام المضادة الأولية للكشف عن Bcl-2 |
| ألبومين المصل البقري | BioLab Technology، بكين، الصين | BTN131070 | كاشف الحجب |
| طقم كشف Calcein/PI | Beyotime، شنغهاي، الصين | C2015M | طقم صبغ الخلايا الحية والميتة |
| طقم فحص نشاط كاسباز-3 | BioLab Technology، بكين، الصين | QN2866 | طقم قياس نشاط كاسباز-3 |
| الأجسام المضادة الأولية لإنزيم كاسباز-3 | Abcam، ماساتشوستس، الولايات المتحدة الأمريكية | ab184787 | الجسم المضاد الأولي للكشف عن caspase-3 |
| كاشف CCK-8 | MedChemExpress, مونماوث جونكشن، نيوجيرسي، الولايات المتحدة الأمريكية | HY-K0301 | كاشف لتقييم حيوية الخلايا |
| الأجسام المضادة الأولية لـ caspase-3 المشطور | Abcam، ماساتشوستس، الولايات المتحدة الأمريكية | ab32042 | جسم مضاد أولي للكشف عن كاسباز-3 المشطور |
| سيكلوهكسيميد | ماكلين، شنغهاي، الصين | H823111 | مثبط تخليق البروتين المستخدم في مقايسات استقرار البروتين |
| سيكلوفوسفاميد | MedChemExpress، مونموث جنكشن، نيوجيرسي، الولايات المتحدة الأمريكية | HY-17420 | تُستخدم لاستحثاث خلل في تكوين الحيوانات المنوية |
| كاشف DAPI | Beyotime، شنغهاي، الصين | C1006 | صبغة نووية متباينة |
| وسط DMEM | ووهان صن سيل للتكنولوجيا الحيوية (Wuhan Sunncell Biotechnology)، هوبي، الصين | SNLM-302 | وسط زراعة الخلايا لخلايا GC-1 |
| محلول العمل للتألق الكيميائي الكهربائي (ECL) | Solarbio، بكين، الصين | SW2030 | ركيزة كيميائية مضيئة للكشف عن حزم البروتين |
| إيتوبوسيد | MedChemExpress، مونموث جنكشن، نيوجيرسي، الولايات المتحدة الأمريكية | HY-13629 | عامل محفز لموت الخلايا المبرمج |
| جهاز قياس التدفق الخلوي | BD Biosciences، كاليفورنيا، الولايات المتحدة الأمريكية | BD FACSCalibur | جهاز لتحليل الموت الخلوي المبرمج |
| برنامج FlowJo | BD Biosciences، كاليفورنيا، الولايات المتحدة الأمريكية | v10.8 | برمجيات تحليل بيانات قياس التدفق الخلوي |
| المجهر الفلوري | Leica، هايدلبرغ، ألمانيا | DM3000 | جهاز التصوير الفلوري |
| جسم مضاد ثانوي IgG موسوم بالفلوريسنت | Servicebio، ووهان، الصين | GB22303 | الأجسام المضادة الثانوية للكشف باستخدام التألق المناعي |
| طقم مقايسة الممتز الموحد للإنزيم (ELISA) للهرمون المنشط للحويصلة | Huamei Biotech، ووهان، الصين | CSB-E06871m | طقم قياس الهرمون المنبه للجريب في المصل |
| الأجسام المضادة الأولية لـ GAPDH | Affinity Biosciences، أوهايو، الولايات المتحدة الأمريكية | T0004 | الأجسام المضادة الضابطة للتحميل في تحليل لطخة ويسترن |
| خلايا GC-1 | Wuhan Sunncell Biotechnology، هوبي، الصين | SNL-302 | خط خلايا الخلايا المنوية في الفأر |
| نظام تصوير الهلام | جهاز تحليل جينبينج (Jinpeng)، شنغهاي، الصين | JP-2880 | نظام تصوير لمعاينة الهلام والبصمة البروتينية |
| نظام تصوير الهلام | Invitrogen, Carlsbad, CA, USA | iBright CL1500 | نظام تصوير التألق الكيميائي لتحليل لطخة ويسترن |
| جسم مضاد من الماعز ضد IgG الأرنب | Servicebio، ووهان، الصين | GB23303 | الأجسام المضادة الثانوية لطريقة لطخة ويسترن |
| محلول الهيماتوكسيلين | BioLab Technology، بكين، الصين | YT165 | صبغة نووية للتحليل النسيجي |
| محلول التمييز بين حمض الهيدروكلوريك والإيثانول | Beyotime، شنغهاي، الصين | C0163S | كاشف التمايز لصبغة الهيماتوكسيلين |
| برنامج ImageJ | المعاهد الوطنية للصحة، الولايات المتحدة الأمريكية | ١.٥٤ ساعة | برمجيات التكميم الصوري |
| محلول تحلل الخلايا لترسيب المناعة (IP) | Beyotime، شنغهاي، الصين | P0013 | محلول التحلل للترسيب المناعي واستخلاص البروتين |
| الأجسام المضادة الأولية لـ Ki67 | Affinity Biosciences, أوهايو، الولايات المتحدة الأمريكية | AF0198 | الأجسام المضادة الأولية للكشف عن Ki67 |
| طقم تحليل السمية الخلوية بإنزيم LDH | Beyotime، شنغهاي، الصين | C0016 | طقم قياس إطلاق إنزيم لاكتات ديهيدروجيناز والتلف الخلوي |
| المجهر الضوئي | أوليمبوس، طوكيو، اليابان | CKX53 | تُستخدم لعدّ الحيوانات المنوية وفحص خصائصها المورفولوجية |
| Lipofectamine 3000 | Invitrogen, Carlsbad, CA, USA | L3000001 | كاشف ترانسفكشن (كاشف نقل الجينات) |
| قارئ الأطباق الدقيقة | Molecular Devices، كاليفورنيا، الولايات المتحدة الأمريكية | SpectraMax Mini | جهاز لقياس الامتصاصية |
| طقم مقايسة الامتصاص المناعي المرتبط بالإنزيم (ELISA) للهرمون الملوتن للفأر | شركة Huamei Biotech، ووهان، الصين | CSB-E12770m | طقم قياس الهرمون اللوتيني في المصل |
| طقم مقايسة الممتز الموحد للإنزيم المرتبط (ELISA) لهرمون التستوستيرون في الفئران | Huamei Biotech، ووهان، الصين | CSB-E05101m | طقم قياس التستوستيرون في المصل |
| صمغ متعادل | BioLab Technology، بكين، الصين | QN1253 | وسط التثبيت للمقاطع النسيجية |
| الأجسام المضادة الأولية لـ p38 | Affinity Biosciences، أوهايو، الولايات المتحدة الأمريكية | AF6456 | الأجسام المضادة الأولية للكشف عن البروتين p38 الكلي |
| بارافورمالدهيد | MedChemExpress، مونماوث جنكشن، نيوجيرسي، الولايات المتحدة الأمريكية | HY-Y0333 | المثبت للخلايا والأنسجة |
| طقم PARIS | Invitrogen، كارلسباد، كاليفورنيا، الولايات المتحدة الأمريكية | AM1921 | طقم فصل الحمض الريبي النووي (RNA) النووي والسيتوبلازمي |
| نظام تفاعل البوليميراز المتسلسل (PCR) | ABI، كاليفورنيا، الولايات المتحدة الأمريكية | ABI PRISM 7300 | جهاز تفاعل البوليميراز المتسلسل في الوقت الحقيقي (Real-time PCR) |
| الأجسام المضادة الأولية لـ p-p38 | Affinity Biosciences، أوهايو، الولايات المتحدة الأمريكية | AF3455 | الأجسام المضادة الأولية للكشف عن بروتين p38 المفسفر |
| محلول بروتيناز ك (Proteinase K) | Beyotime، شنغهاي، الصين | ST532 | كاشف نفاذية الأنسجة قبل صبغ TUNEL |
| أغشية PVDF | Millipore، ماساتشوستس، الولايات المتحدة الأمريكية | ISEQ00010 | أغشية نقل البروتين في تحليل لطخة ويسترن (Western blotting) |
| الأجسام المضادة الأولية QKI-5 | Abcam، ماساتشوستس، الولايات المتحدة الأمريكية | ab126742 | جسم مضاد أولي للكشف عن QKI-5 |
| محلول ربط الحمض النووي الريبي (RNA) | Invitrogen، كارلسباد، كاليفورنيا، الولايات المتحدة الأمريكية | 65040D | محلول منظم لتفاعلات ارتباط البروتين بالحمض النووي الريبي (RNA) |
| محلول تحميل SDS (سلفات دوديسيل الصوديوم) | Beyotime، شنغهاي، الصين | P0286 | محلول تحميل العينات لتقنية SDS-PAGE |
| حبيبات الستربتافيدين المغناطيسية | MedChemExpress، مونماوث جانكشن، نيوجيرسي، الولايات المتحدة الأمريكية | HY-K0208 | خرزات مغناطيسية لالتقاط مجسات الحمض الريبي النووي (RNA) المسمى بالبيوتين |
| طقم TB Green FAST qPCR | Takara، طوكيو، اليابان | CN830S | طقم كواشف لتفاعل البوليميراز المتسلسل الكمي |
| Triton X-100 | ماكلين، شنغهاي، الصين | T824275 | كاشف النفاذية |
| كاشف TRIzol | Invitrogen، كارلسباد، كاليفورنيا، الولايات المتحدة الأمريكية | 15596018CN | كاشف لاستخلاص الحمض النووي الريبوزي الكلي (RNA) |
| محلول الكشف عن TUNEL | Beyotime، شنغهاي، الصين | C1086 | كاشف للكشف عن تفتت الحمض النووي (DNA) |
| زايلين | ماكلين، شنغهاي، الصين | X821391 | كاشف لإزالة البارافين وتصفية الأنسجة |
المراجع
- Bhattacharya I, Sharma SS, Majumdar SS. Etiology of male infertility: an update. Reprod Sci. 2024;31(4):942-965.
- Dong S, et al. Testicular aging, male fertility and beyond. Front Endocrinol (Lausanne). 2022;13:1012119.
- Wang X, et al. Decoding the pathogenesis of spermatogenic failure in cryptorchidism through single-cell transcriptomic profiling. Cell Rep Med. 2024;5(9):101709.
- Stallmeyer B, et al. Inherited defects of piRNA biogenesis cause transposon de-repression, impaired spermatogenesis, and human male infertility. Nat Commun. 2024;15(1):6637.
- Szlachcikowska D, Koszła O, Sołek P, Tabęcka-Łonczyńska A. Non-canonical apoptosis mediates oxaliplatin-induced disruption of spermatogenic cells: implications for male fertility. Chem Biol Interact. 2026;431:112009.
- Chi YN, et al. Geniposide attenuates spermatogenic dysfunction via .inhibition of endoplasmic reticulum stress in male mice. Chem Biol Interact. 2022;366:110144.
- Guo XB, et al. Protective effect of bone marrow mesenchymal stem cell-derived exosomes against the reproductive toxicity of cyclophosphamide is associated with the p38 MAPK/ERK and AKT signaling pathways. Asian J Androl. 2021;23(4):386-391.
- Lamb DJ. Chromosome defects and male factor infertility. Fertil Steril. 2025;123(6):933-942.
- Kathrins M, Niederberger C. Diagnosis and treatment of infertility-related male hormonal dysfunction. Nat Rev Urol. 2016;13(6):309-323.
- Piechka A, et al. Molecular mechanisms of cellular dysfunction in testes from men with non-obstructive azoospermia. Nat Rev Urol. 2024;21(2):67-90.
- Li Z, et al. The role of Cistanches Herba and its ingredients in improving reproductive outcomes: a comprehensive review. Phytomedicine. 2024;129:155681.
- Jiang X, et al. Shenling Baizhu San improves spermatogenic dysfunction in hyperuricemia mice by regulating Sirt3/Nrf2 to inhibit testicular ferroptosis. J Ethnopharmacol. 2025;340:119310.
- Deng W, Sun D, Cai B, Jin B. Yangjing capsule improves oligoasthenozoospermia by promoting nitric oxide production through the PLCγ1/AKT/eNOS pathway. Front Pharmacol. 2023;14:1056091.
- Zhao H, et al. Yangjing Capsule ameliorates spermatogenesis in male mice exposed to cyclophosphamide. Evid Based Complement Alternat Med. 2015;2015:980583.
- Jin B, et al. Yangjing Capsule improves testicular angiogenesis by activating the VEGFA/eNOS signaling pathway. Evid Based Complement Alternat Med. 2020;2020:1957267.
- Guo W, et al. Chlorocholine chloride exposure induced spermatogenic dysfunction via .iron overload caused by AhR/PERK axis-dependent ferritinophagy activation. Ecotoxicol Environ Saf. 2024;274:116193.
- Wang Z, et al. Yangjing Capsule extract promotes proliferation of GC-1 Spg cells. Evid Based Complement Alternat Med. 2014;2014:640857.
- Zhang P, et al. LncRNA-mediated adipogenesis in different adipocytes. Int J Mol Sci. 2022;23(13).
- Núñez-Martínez HN, Recillas-Targa F. Emerging functions of lncRNA loci beyond the transcript itself. Int J Mol Sci. 2022;23(11).
- Herman AB, Tsitsipatis D, Gorospe M. Integrated lncRNA function upon genomic and epigenomic regulation. Mol Cell. 2022;82(12):2252-2266.
- Wang JZ, et al. QKI-5 regulates the alternative splicing of the cytoskeletal gene ADD3 in lung cancer. J Mol Cell Biol. 2021;13(5):347-360.
- Zeng Y, et al. Nickel induces blood-testis barrier damage through ROS-mediated p38 MAPK pathways in mice. Redox Biol. 2023;67:102886.
- Luo D, He Z, Yu C, Guan Q. Role of p38 MAPK signaling in testis development and male fertility. Oxid Med Cell Longev. 2022;2022:6891897.
- Xia C, et al. LncRNA CCAT1 enhances chemoresistance in hepatocellular carcinoma by targeting QKI-5. Sci Rep. 2022;12(1):7826.
- Li K, et al. A long noncoding RNA binding to QKI-5 regulates germ cell apoptosis via .the p38 MAPK signaling pathway. Cell Death Dis. 2019;10(10):699.
- Zhou X, et al. ANKRD49 inhibits etoposide-induced intrinsic apoptosis of GC-1 cells by modulating NF-κB signaling. Mol Cell Biochem. 2019;457(1-2):21-29.
- Fang C, et al. Integrative proteomics and metabolomics approach to identify the key roles of icariin-mediated protective effects against cyclophosphamide-induced spermatogenesis dysfunction in mice. Front Pharmacol. 2022;13:1040544.
- Li K, et al. Adeno-associated-virus-mediated delivery of CRISPR-CasRx induces efficient RNA knockdown in the mouse testis. Theranostics. 2024;14(10):3827-3842.
- Yi H, et al. Retinoic acid mitigates NSC319726-induced spermatogenesis dysfunction through cuproptosis-independent mechanisms. Cell Biol Toxicol. 2024;40(1):26.
- Guo Y, Wang A, Liu X, Li E. Effects of resveratrol on reducing spermatogenic dysfunction caused by high-intensity exercise. Reprod Biol Endocrinol. 2019;17(1):42.
- Beeraka NM, et al. Ginsenoside Rh4 suppresses Notch3 and PI3K/Akt signaling to inhibit the growth and metastasis of gastric cancer cells. J Cancer Biomol Ther. 2025;2(1):145-156.
- Li P, et al. Proteomic analysis of cisplatin-induced spermatogenesis defects in mice. Ann Med. 2026;58(1):2612816.
- Wang Z, et al. Melatonin ameliorates paclitaxel-induced spermatogenesis and fertility defects in mice. J Cell Mol Med. 2022;26(4):1219-1228.
- Abdi M, et al. Cyclophosphamide-induced infertility and the impact of antioxidants. Am J Reprod Immunol. 2024;92(6):e70014.
- Özbilgin MK, Demirören S, Üçöz M, Oztatlici M. Cyclophosphamide suppresses spermatogenesis in the testes of mice through downregulation of miR-34b and miR-34c. Andrologia. 2021;53(7):e14071.
- Poojary KK, et al. Curcumin nanocrystals attenuate cyclophosphamide-induced testicular toxicity in mice. Toxicol Appl Pharmacol. 2021;433:115772.
- Cao J, et al. Single-cell map of human azoospermic testes caused by cyclophosphamide chemotherapy. Sci Data. 2024;11(1):163.
- Dong Y, et al. New insights into polycyclic aromatic hydrocarbons: Phenanthrene targets ribosomes to induce neuronal apoptosis. Aquat. Toxicol. 2026;298:107884.
- Wang Y, et al. Interplay between elemental imbalance-related PI3K/Akt/mTOR-regulated apoptosis and autophagy in arsenic (III)-induced jejunum toxicity of chicken. Environ. Sci. Pollut. Res. Int. 2018;25(19):18662-18672.
- Liu H, et al. Integrating network toxicology, transcriptomics and experimental validation to elucidate the potential mechanisms of fluoride-induced neurotoxicity in zebrafish. Comp. Biochem. Physiol. C Toxicol. Pharmacol. 2026;306:110549.
- Saleh DO, et al. Cyclophosphamide-induced testicular injury: the role of chrysin in mitigating iron overload and ferroptosis. Naunyn Schmiedebergs Arch Pharmacol. 2025;398(5):5475-5489.
- Dong S, et al. Loss of lncRNAs 1700101O22Rik and 1700027A15Rik causes sperm malformation and subfertility. Andrology. 2025;13(5):1223-1235.
- Liu W, et al. A novel meiosis-related lncRNA, Rbakdn, contributes to spermatogenesis by stabilizing Ptbp2. Front Genet. 2021;12:752495.
- Sun TC, et al. LncRNAs induce oxidative stress and spermatogenesis by regulating endoplasmic reticulum genes and pathways. Aging (Albany NY). 2021;13(10):13764-13787.
- Hua R, et al. DNM3OS enhances the apoptosis and senescence of spermatogonia associated with nonobstructive azoospermia by providing miR-214-5p and decreasing E2F2 expression. Anal Cell Pathol (Amst). 2023;2023:1477658.
- Wang S, et al. Quaking 5 suppresses TGF-β-induced epithelial-mesenchymal transition and cell invasion in lung adenocarcinoma. EMBO Rep. 2021;22(6):e52079.
- Chen X, et al. The emerging roles of the RNA-binding protein QKI in cardiovascular development and function. Front Cell Dev Biol. 2021;9:668659.
- Li J, et al. Qiangjing tablets repair blood-testis barrier dysfunction in rats by regulating oxidative stress and the p38 MAPK pathway. BMC Complement Med Ther. 2022;22(1):133.
- Tang Z, et al. MRE11 is essential for the long-term viability of undifferentiated spermatogonia. Cell Prolif. 2024;57(9):e13685.
- Jiao Y, Feng Z, Zhang T, Chen X. Impact of Vitamin D(3) Supplementation on Androgens and Semen Parameters in Infertile Men: A Systematic Review and Meta-Analysis Based on Prospective Randomised Controlled Trials. Arch. Esp. 2025;78(6):772-781.
الوصول مقيد. يرجى تسجيل الدخول أو بدء فترة تجريبية لعرض هذا المحتوى.