يصف هذا البروتوكول نموذجاً للقوارض للإصابة بقصر النظر دون الحاجة إلى استخدام النظارات الواقية أو خياطة الجفون، ويتم تحفيز هذا النموذج عن طريق حقن TGF-β2 تحت الملتحمة، مما ينشط محور NLRP3/IL-1β-MMP2 مسبباً استطالة المحور البصري، بينما يعمل نظام تسجيل القياسات الحيوية المقسم على تقليل الآثار الاصطناعية الناتجة عن التخدير لضمان الحصول على بيانات عالية الدقة.
مقالة منهجية
إنشاء نموذج قصر نظر لدى القوارض مستحث بواسطة عامل النمو التحويلي بيتا (TGF-β) باستخدام الحقن تحت الملتحمة
في هذه المقالة
ملخص
الملخص
يعد قصر النظر مشكلة صحية عامة عالمية كبرى تتميز باستطالة محورية مفرطة وإعادة تشكيل للمصفوفة خارج الخلية (ECM) في الصلبة. وبينما تُعد النماذج التجريبية ضرورية لاستقصاء هذه الآليات، فإن طرق إزالة التركيز البصري التقليدية في القوارض الصغيرة تفرض قيوداً تقنية. وهنا، تم إنشاء نموذج دوائي معياري لقصر النظر وتقييمه عبر حقن تحت الملتحمة المتكررة لعامل النمو التحويلي بيتا (TGF-β). ولتحقيق توصيل مستهدف، تم تطوير تقنية تثبيت جراحية ثنائية اليد لقلب الجفن العلوي، مما يسمح لإبرة قياس 33 باستهداف ملتحمة الجفن بزاوية ضحلة تتراوح بين 20°–30°. ومن خلال الفرز الحي في الجرذان، تم تحديد TGF-β2 (بجرعة 500 pg/eye) كمحفز بارز لنمو الجزء الخلفي من العين. وكشف معايرة الاستجابة للجرعة اللاحقة في الفئران عن ملف على شكل حرف U مقلوب. وفي مجموعة التحقق الأولية، أدت أقل جرعة (250 pg/eye) إلى استطالة محورية ملحوظة (0.197 ± 0.012 mm) وتحولات انكسارية قصيرة النظر (−1.58 ± 0.63 D). وعلى المستوى الجزيئي، أدى إعطاء TGF-β2 المتكرر إلى تنشيط شلال الجسيم الالتهابي المكون من عائلة مستقبلات شبيهة بـ NOD التي تحتوي على نطاق البيرين 3 (NLRP3) / إنترلوكين-1 بيتا (IL-1β) في الشبكية، وزاد من تعبير ميتالوبروتينيز المصفوفة 2 (MMP2) في كلا النوعين. وبالاقتران مع نظام تسجيل قياسات حيوية مقسم على يومين يقلل من الآثار الاصطناعية المرتبطة بالتخدير، يوفر هذا البروتوكول منصة موثوقة وقابلة للتوسع لتقييم التدخلات المضادة لقصر النظر.
المقدمة
أصبح قصر النظر مصدر قلق رئيسي للصحة العامة على مستوى العالم، حيث تشير التوقعات إلى أنه سيؤثر على ما يقرب من 50% من سكان العالم بحلول عام 20501,2. ويتمثل المحرك المرضي الأساسي لقصر النظر التقدمي في الاستطالة المحورية المفرطة للعين، مما يتسبب في إعادة تشكيل نشطة للمصفوفة خارج الخلية وتدهور الأنسجة، وهو ما يؤدي إلى ترقق هيكلي في أغلفة العين الخلفية3. وتشمل هذه التغيرات الديناميكية كلاً من إعادة التشكيل الهيكلي (التي تتميز بتدهور المصفوفة خارج الخلية في الصلبة، وفقدان الكولاجين، وترقق الطبقة الخلفية) وإعادة التشكيل الوظيفي (التي تتميز بانخفاض الصلابة الميكانيكية الحيوية، وتغير تروية المشيمية، وإشارات التهابية غير طبيعية في الشبكية والظهارة الصبغية للشبكية RPE)، وهي عوامل تزيد مجتمعة من خطر الإصابة بمضاعفات تهدد الرؤية وضعف بصري لا يمكن علاجه على مدى الحياة، بما في ذلك اعتلال البقعة المصاحب لقصر النظر، وانفصال الشبكية، والمياه الزرقاء (الجلوكوما)، وإعتام عدسة العين المبكر4,5,6,7. وعلى الرغم من الأعباء السريرية والاجتماعية والاقتصادية الكبيرة لهذه الحالة، إلا أن الآليات الجزيئية الدقيقة التي تتحكم في نمو العين غير الطبيعي لا تزال غير مفهومة بالكامل. لذلك، فإن توضيح مسارات الإشارات التي تحفز الاستطالة المحورية وتطوير نماذج حيوانية موحدة وقابلة للتكرار تعد خطوات حاسمة نحو تحديد أهداف علاجية جديدة وإدارة وباء قصر النظر العالمي.
بينما يُعد قصر النظر الناتج عن حرمان الشكل (FDM) وقصر النظر الناجم عن العدسة (LIM) بمثابة المعايير الذهبية لدراسة عدم التركيز البصري والتموضع البصري الصحيح (emmetropization)8,9,10,11، فإن تنفيذ نماذج عدم التركيز البصري هذه في القوارض الصغيرة ــ وخاصة الفئران ــ يطرح تحديات تقنية كبيرة. فغالباً ما يؤدي سلوك التنظيف النشط لدى الفئران إلى انفصال النظارات الواقية، مما يستلزم اتخاذ تدابير مضادة مجهدة مثل الياقات الواقية12. علاوة على ذلك، فإن الاحتكاك الميكانيكي، وخياطة الجفون، والبيئات الدقيقة المتغيرة تحت السادّ تؤدي بشكل روتيني إلى مضاعفات قرنية ثانوية، مثل العتامة أو تقرح القرنية13,14,15. ورغم أن FDM وLIM يظلان نموذججين أساسيين لدراسة عدم التركيز البصري، إلا أن مضاعفات سطح العين الثانوية ــ مثل عتامة القرنية، أو الاحتكاك الميكانيكي، أو تهيج خياطة الجفون ــ قد تتدخل في قياسات القياسات الحيوية البصرية15. وتؤدي هذه الآثار الإجرائية إلى زعزعة استقرار الطبقة الدمعية وشفافية القرنية، مما يؤدي إلى ارتفاع معدلات الاستبعاد التجريبي وزيادة التشويش في القياسات13,16. وفي المقابل، يتجاوز التحفيز الدوائي السدادات الفيزيائية، مما يحافظ على وضوح القرنية ويسهل إجراء قياسات حيوية بصرية وفوق صوتية موثوقة وقابلة للتكرار. في حالات قصر النظر، يتم دفع الاستطالة المفرطة للعين من خلال إعادة تشكيل المصفوفة خارج الخلوية (ECM) في الصلبة الخلفية17، حيث تعمل نظائر عامل النمو التحويلي بيتا (TGF-β) كمنظمات رئيسية لتخليق الكولاجين والبروتيوغليكان18,19. وتشير الأدلة الناشئة إلى أن إشارات TGF-β قد تتقاطع مع الالتهاب العيني منخفض الدرجة والتحلل المصفوفي الذي يتوسطه البروتياز المعدني للمصفوفة 2 (MMP2)20، مما قد يساهم في إعادة تشكيل الصلبة والاستطالة المحورية21,22,23,24. ويدعم ذلك ارتفاع مستويات عامل النمو التحويلي بيتا 2 (TGF-β2)، وإنترلوكين-6 (IL-6)، وMMP2 المسجلة في الخلط المائي للعيون المصابة بقصر النظر25,26,27، فضلاً عن تنشيط محور TGF-β / العامل النووي كابا ب (NF-κB) / MMP2 في النماذج التجريبية20,21. وبينما تعكس هذه النتائج الإشارات الجزيئية الديناميكية داخل العين أثناء تطور قصر النظر، فإن المساهمات التشريحية النسبية في مؤشرات الخلط المائي ــ سواء كانت من الإفرازات الأمامية المحلية، أو تدفق المستودع تحت الملتحمة، أو الانتشار الزجاجي الخلفي ــ لا تزال بحاجة إلى توضيح كامل. ومع ذلك، يجب إدراك نطاق ومحدودية هذا النموذج الدوائي؛ فبما أن إيصال TGF-β تحت الملتحمة يتجاوز عدم التركيز البصري ومسارات المعالجة البصرية، فإن هذا النموذج هو الأكثر ملاءمة لتحليل الشلالات الكيميائية الحيوية النهائية ــ وتحديداً إعادة تشكيل ECM للصلبة التي يتوسطها محور TGF-β2 / عائلة مستقبلات تشبه NOD التي تحتوي على نطاق بيرين 3 (NLRP3) / إنترلوكين-1 بيتا (IL-1β) / MMP2 ــ وفحص العوامل العلاجية المرشحة التي تستهدف مسارات الالتهاب أو تحلل المصفوفة. وعلى العكس من ذلك، فإنه غير مناسب لدراسة نقل الإشارات البصرية الأولية، أو الإشارات البصرية من الشبكية إلى الصلبة، أو آليات التموضع البصري الصحيح المدفوعة بالضوء البيئي، حيث تظل نماذج FDM أو LIM التقليدية لا غنى عنها.
لسد هذه الثغرات المنهجية، تم إنشاء نموذج لقصر النظر والتحقق من صحته باستخدام حقن متكررة تحت الملتحمة لـ TGF-β في الجرذان والفئران، مما يوفر نهجاً مطوراً يقلل من الصدمات الميكانيكية وتهيج سطح العين. ومن خلال تجنب الحاجة إلى السدادات الفيزيائية، يوفر هذا البروتوكول تحكماً دقيقاً في الجرعات الدوائية والجداول الزمنية التجريبية، مع تقليل العوامل المربكة السلوكية المحتملة المرتبطة بالأجهزة المثبتة على الرأس بشكل كبير. في هذه الدراسة، تم تقييم فعالية ثلاثة أشكال إسوية من TGF-β البشري المؤتلف (والتي تمتلك تفاعلية متقاطعة وظيفية مثبتة في أنسجة القوارض مدعومة بحفظ التسلسل28) في الجرذان، وتم رسم خرائط حركية الاستجابة للجرعة غير الخطية لـ TGF-β2 في الفئران. والأهم من ذلك، أن هذا النظام الموحد أدى بكفاءة إلى تحفيز قصر النظر الظاهري — الذي يتميز بإطالة محورية متزامنة وتحولات انكسارية قصيرة النظر — ونشط محور NLRP3 (عائلة مستقبلات شبيهة بـ NOD تحتوي على نطاق pyrin 3) / IL-1β (إنترلوكين-1β) الالتهابي و MMP2 في الشبكية. وفي النهاية، يوفر هذا البروتوكول إطاراً قابلاً للتطبيق ومحدداً جزيئياً لاستهداف إعادة تشكيل الصلبة اللاحقة مع تفصيل حدوده التشغيلية المحددة.
البروتوكول
أُجريت جميع التجارب على الحيوانات وفقًا لإرشادات وقواعد لجنة رعاية الحيوانات واستخدامها المؤسسية (IACUC) في جامعة الصين الطبية (CMU). وتم الالتزام في جميع الإجراءات بإعلان جمعية أبحاث الرؤية وطب العيون (ARVO) بشأن استخدام الحيوانات في أبحاث طب العيون والرؤية. وتم الحصول على الموافقة الكاملة من لجنة IACUC في جامعة CMU قبل بدء جميع التجارب. وتم التخلص من الحيوانات عند انتهاء التجربة وفقًا بدقة لإرشادات لجنة رعاية الحيوانات واستخدامها المؤسسية (IACUC) في جامعة الصين الطبية (CMU) وقواعد رفاه الحيوان المحلية.
1. الحيوانات والموافقة الأخلاقية
- احصل على ذكور جرذان براون نوروي (BN) (بأعمار 3–4 أسابيع، وبوزن 60–80 غرام) وذكور فئران C57BL/6 (B6) (بأعمار 3–4 أسابيع، وبوزن 15–20 غرام) من مورد مناسب للحيوانات المعملية.
- أبقِ جميع الحيوانات في بيئة خاضعة للتحكم (دورة ضوئية 12 ساعة نهار/12 ساعة ليل، ودرجة حرارة 22 °C ± 2 °C، ورطوبة نسبية 50% ± 10%) مع إتاحة طعام قياسي وماء بشكل حر.
- سمح بفترة تأقلم لا تقل عن 3 أيام قبل بدء أي إجراء تجريبي.
- قسّم الجرذان أو الفئران عشوائيًا إلى مجموعات علاجية: مجموعة السيطرة باستخدام المذيب ومجموعة الحقن بعامل تحوّلي لنمو-بيتا 2 (TGF-β2). استخدم على الأقل N = 5 حيوانات لكل مجموعة لضمان قوة إحصائية كافية.
ملاحظة: تم استخدام تصميم بين الموضوعات. تلقّت العينان في الحيوان الواحد نفس المعالجة (إما علاج مزدوج بالسيطرة باستخدام المذيب [1–2 µL BSS] أو علاج نشط مزدوج بـ rhTGF-β2).- قسّم المعايير البصرية الثنائية للعينين (الطول المحوري وخطأ الانكسار) لكل حيوان.
ملاحظة: تأكد من الحصول على موافقة مكتوبة من لجنة CMU-IACUC، وأن جميع الأفراد القائمين بالإجراءات تلقّوا التدريب والاعتماد اللازمين.
- قسّم المعايير البصرية الثنائية للعينين (الطول المحوري وخطأ الانكسار) لكل حيوان.
٢. تحضير محلول TGF-β2
ملاحظة: قم بتنفيذ جميع خطوات إعادة التكوين والتخفيف داخل خزانة حماية حيوية معتمدة باستخدام تقنيات معقمة بدقة.
- أعد تكوين بروتين TGF- البشري المعاد تركيبه المجفف بالتجميدβ2 في جلسرين معقم بنسبة 50٪ يحتوي على 0.1٪ ألبومين مصل البقر (BSA) لإعداد محفوظة 100 µg/mL المحلول المخزون
- حضّر المحاليل العاملة بإعداد تخفيفات متسلسلة من المحلول المخزون في محلول الملح المتوازن (BSS) المعقّم.
- بالنسبة لمجموعات الجرذان (جرعة 500 بيكومتر)، قم بتخفيف المحلول المخزون إلى تركيز نهائي قدره 250 نانوغرام/مل (250 بيكومتر/مل)µL) لـ 2 µL حجم الحقن لكل عين
- لأجسام الفئران المُصابة بالاستجابة للجرعة، حضّر ثلاث محاليل عمل مستقلة بتراكيز 250 نانوغرام/مل، 375 نانوغرام/مل، و500 نانوغرام/مل (250، 375، و500 بيكوميغرام/µL) لـ 1 µL حجم الحقن لكل عين
- أعدّ وحدات فردية الاستخدام بحجم 15–20 µL نقلات في أنابيب ميكرو سانترة معقمة، وتجميد فوري في النيتروجين السائل، وتخزين عند -20 °C. قم بإذابة الكمية المطلوبة على الجليد مباشرة قبل الاستخدام.
تحذير: يمكن للنيتروجين السائل أن يسبب حروقًا باردة شديدة ويمثل خطر الاختناق. يجب ارتداء معدات الحماية الشخصية المناسبة للعمل في درجات الحرارة المنخفضة، والتعامل معه في مكان جيد التهوية وفقًا للإجراءات الأمنية المعمول بها في المؤسسة. - أعد محلول السيطرة المرافقة بالتوازي باستخدام محلول BSS المعقّم مع إضافة مصفوفة مكافئة تتكون من 50% جلسرين و0.1% BSA.
3. إجراء الحقن تحت الملتحمة
- ضع الحيوانات في غرفة التخدير مع 3–4% من الأيزوفلوران للتحريض على التخدير. بعد ذلك، انقل الحيوان إلى قناع أنفي يزود بـ 1.5–2% من الأيزوفلوران للحفاظ على التخدير.
تحذير: الأيزوفلوران مخدر متطاير. استخدم نظام جمع مناسب وعامله وفقًا للإجراءات المعمول بها في المؤسسة للصحة والسلامة المهنية. - تحقق من عمق التخدير الكافي بالتأكد من غياب استجابة سحب الأصبع عند الضغط عليه.
- ضع الحيوان في وضع الاستلقاء البطني تحت ضوء بصري ليفي. امسك الجفن العلوي بلطف وارفعه واقلبه قليلاً باستخدام ملقط دقيق للكشف الكامل عن الغشاء الملتحمي الجفني والزاوية الملتحمية (الشكل 1B).
- بلل مسبقاً حقنة زجاجية دقيقة سعة 10 µL وإبرة مقاس 33 مرتين إلى ثلاث مرات بالحل العامل لإزالة المساحة الميتة. املأ الحجم المستهدف (2 µL للجرذان أو 1 µL للفئران) وأزل جميع الفقاعات الصغيرة.
تحذير: عامل الإبر والأدوات الحادة بحذر وDispose عنها في حاوية حادة معتمدة وفقًا للوائح المؤسسية. - وجه الإبرة 33-G بحيث يكون الميل مواجهًا للأعلى (الميل لأعلى) واستهدف موقع الإدخال المحدد على سطح الغشاء الملتحمي الجفني المكشوف (الشكل 1B،C).
- أدخل طرف الإبرة عبر الظهارة الملتحمية بزاوية ضحلة تتراوح بين 20°–30° (الشكل 1C).
- قم بدفع الإبرة برفق عبر المساحة تحت المخاطية الضيقة ووراء الزاوية الملتحمية إلى النطاق تحت الملتحمي الجفني (الشكل 1C).
خطوة حرجة (الهياكل التي يجب تجنبها): تجنب تمامًا اختراق الغدد الميبومية الكامنة أو ثقب الهياكل العينية الأعمق بالخطأ. تأكد بصريًا من التوضع السطحي الصحيح تحت الضوء من خلال التأكد من بقاء ميل الإبرة مرئيًا أسفل السطح الشفاف للغشاء الملتحمي طوال عملية التقدم. - أَدخل المحلول ببطء على مدى 5–10 ثوانٍ. ابقَ على الإبرة في مكانها لمدة 5 ثوانٍ إضافية قبل سحبها ببطء لمنع تدفق السائل عكسيًا.
ملاحظة: يتم التأكد من التسليم الصحيح تحت الملتحمي من خلال ارتفاع محلي فوري للغشاء الملتحمي وبياضه (تكوّن كيس مصلي).- إذا فشل تكوّن الكيس المصلي أو حدث تسرب كبير، قم بإجراء حقن إضافي واحد في المنطقة الملتحمية الجفنية السفلية وسجل الانحراف في سجل التجربة.
ملاحظة: قصر إعادة الحقن على محاولة واحدة فقط لكل عين في كل جلسة؛ استبعد الحيوانات التي تفشل فيها التسليمية بشكل مستمر من التحليل الطويل الأمد.
- إذا فشل تكوّن الكيس المصلي أو حدث تسرب كبير، قم بإجراء حقن إضافي واحد في المنطقة الملتحمية الجفنية السفلية وسجل الانحراف في سجل التجربة.
- نظف تجويف الحقنة الدقيقة بين حقن الحيوانات الفردية ضمن المجموعة نفسها عن طريق شطفه ثلاث مرات بحل كحولي معقم بنسبة 70%، ثم خمس مرات بمحاليل ملحية معقمة.
- افحص طرف إبرة 33-G تحت تكبير كل 3–5 حقنات، واستبدل الإبرة فورًا إذا حدث تبليط أو انحناء في الطرف.
- قم أولاً بحقن جميع الحيوانات الضابطة (التي تتلقى المذيب) قبل التعامل مع أو حقن مجموعات العلاج، وذلك لاستبعاد خطر التلوث الدوائي العرضي. كرر دورة تعقيم الحقنة قبل الانتقال إلى مجموعات العلاج.
- اشطف برميل الحقنة والمكبس بحل تنظيف مخصص للحقنات الدقيقة، ثم بماء فوق نقي وبكحول إيثيلي مطلق بعد كل جلسة تجريبية، واحفظها جافة.
- كرر الحقن تحت الملتحمي مرة واحدة أسبوعيًا على مدار ثلاث أسابيع متتالية (الأيام 0، 7، و14). قم بالتقييمات البيومترية الطويلة الأمد عند القاعدة (اليومين -1 و0) والنهاية (اليومين 20 و21) كما هو مفصل في القسم 4.
- ضع الحيوان في قفص دافئ للتعافي مبطن بمناديل ورقية بعد الحقن. راقب الحيوان باستمرار حتى يعود إلى وضع الاستلقاء الصدري الكامل ويعود النشاط الحركي الطبيعي.
- افحص العيون تحت مجهر مجسم بعد التعافي لاستبعاد حدوث نزيف داخل العين أو عتامة القرنية أو صدمة ميكانيكية حادة. راقب الحيوانات يوميًا بحثًا عن علامات الإجهاد أو العدوى الموضعية.
4. طرق التحقق من النموذج
- تقييم الخطأ الانكبابي البصري
- ضع القوارض على وسادة تسخين خاضعة للتحكم الحراري للحفاظ على درجة حرارة الجسم الفسيولوجية ومنع تكون إعتام العدسة الناتج عن التخدير. حافظ على الحيوانات تحت تأثير تخدير خفيف بإيزوفلوران (1–1.5%) عن طريق قناع أنفي لضمان عمق تخدير متسق.
- أَدخِل قطرة واحدة من مايدرن-بي (0.5% تروبيكاميد و0.5% هيدروكلوريد فينيليفرين) في كل عين قبل القياس بـ 10–15 دقيقة لاستثارة شلل العضلة الهدبية الكامل وتوسيع الحدقة.
- ضع الحيوان في وضع الاستلقاء الصدري تحت إضاءة محيطة خافتة وغير مباشرة. طبّق محلول ملحي معقم باستمرار حتى لحظة الاستحواذ البصري للحفاظ على شفافية القرنية.
- قم بقياس انكسار العين باستخدام جهاز قياس الانكسار الضوئي الأوتوماتيكي بالأشعة تحت الحمراء خلال فترة صارمة تتراوح بين 5–10 دقائق بعد بدء التخدير. بالنسبة للجرذان من سلالة BN، اسحب الجفون بلطف يدويًا للكشف الكامل عن الحدقة المتوسعة أثناء القياس.
- الحصول على ثلاث قراءات بصرية مستقلة لكل عين ومتوسط القيم لتحديد خط الأساس أو درجة الانكسار عند النقطة النهائية.
الخطوة الحاسمة (التوقيت &؛ التسلسل): قم بإجراء التصوير الضوئي للانكسار في اليوم الأول من تسلسل التقييم (اليوم -1 كقيمة أساسية؛ اليوم 20 كنقطة نهائية) في إضاءة خافتة، وقبل أي إجراءات تلامسية. يؤدي إجراء التصوير الضوئي للانكسار بعد الموجات فوق الصوتية التلامسية أو تطبيق هلام الصدى الصوتي إلى اضطراب شديد في بصريات القرنية، وتشتت الضوء تحت الأحمر، وبطلان القراءات الانكسارية التلقائية.
- قياس الطول المحوري باستخدام الموجات فوق الصوتية من نوع باء المسح ذات التردد العالي
- في اليوم التالي (اليوم 0 للقيمة القاعدية أو اليوم 21 للنقطة النهائية)، قِّم الطول المحوري للعينة تحت تأثير تخدير الأيزوفلوران الخفيف (1–1.5%) باستخدام مجس موجات فوق صوتية خطي محمول بتردد 16 ميغاهيرتز، معاير لسرعة الصوت في أنسجة القوارض (1532–1550 م/ث).
- بالنسبة لفئران السلالة B6 (الواجهة القرنوية المباشرة): طبّق طبقة واقية أساسية من هلام جينبول كاربومير (0.2٪) مباشرة على القرنية، يليها طبقة من هلام صوتي قياسي.
ملاحظة: تأكد من أن طبقة الجل تغطي السطح القرنوي بالكامل دون تشكل فقاعات هواء محبوسة، لأنها تسبب توهينًا صوتيًا. - بالنسبة للجرذان من سلالة BN (الواجهة عبر الجفن): ضع الحيوان بجفون مغلقة، طبّق هلام الموجات فوق الصوتية على السطح الخارجي للجفن، ثم احصل على القياسات عبر الجفن.
ملاحظة: يلغي القياس عبر الجفن تماسًا مباشرًا مع القرنية، مما يقلل بشكل كبير من خطر خدش القرنية في عيون القوارض الأكبر حجمًا.
- بالنسبة لفئران السلالة B6 (الواجهة القرنوية المباشرة): طبّق طبقة واقية أساسية من هلام جينبول كاربومير (0.2٪) مباشرة على القرنية، يليها طبقة من هلام صوتي قياسي.
- قم بمحاذاة مجس الموجات فوق الصوتية وقم بقياس الطول المحوري على طول المحور البصري المركزي، من واجهة العين الأمامية إلى جدار الصدى الصلبة الخلفي.
- احصل على عشرة مقاطع رأسيّة (B-scan) مستقلة ومكررة لكل عين، ثم احسب متوسط الطول المحوري.
- قم بتنظيف هلام الأكوستيك المتبقي من العين بلطف باستخدام محلول BSS معقم مباشرة بعد الانتهاء من الإجراء لمنع تهيج القرنية بعد العملية.
الخطوة الحرجة (لمسة خفيفة بلا ضغط): ضع مجس الموجات فوق الصوتية على واجهة الجل بلمسة خفيفة جدًا وبلا أي ضغط. إن ممارسة أي ضغط مادي نازل على قمة القرنية يؤدي إلى انضغاط اصطناعي لعمق الحجرة الأمامية، مما يُحدث تقصيرًا زائفًا في الطول المحوري. - سجّل متوسط قياسات الطول المحوري وانحراف الانكسار للتحليل اللاحق.
- في اليوم التالي (اليوم 0 للقيمة القاعدية أو اليوم 21 للنقطة النهائية)، قِّم الطول المحوري للعينة تحت تأثير تخدير الأيزوفلوران الخفيف (1–1.5%) باستخدام مجس موجات فوق صوتية خطي محمول بتردد 16 ميغاهيرتز، معاير لسرعة الصوت في أنسجة القوارض (1532–1550 م/ث).
النتائج
تأسيس والتحقق التشريحي من نموذج الحقن تحت الملتحمة
لمعالجة التباين التقني المرتبط بوضع النظارات البصرية أو خياطة الجفون، تم التحقق من صحة الحيز تحت الملتحمة بين الملتحمة الجفنية والملتحمة البصلية كخزان موضعي مستهدف للدواء (الشكل 1A). وقد وفر الوصول التشريحي عبر القبو العلوي تعريضاً متسقاً للموقع المستهدف مع الحفاظ على سلامة سطح العين (الشكل 1B). تم تأكيد التأسيس الناجح للنموذج من خلال معايير تشغيلية وبيومترية محددة، بما في ذلك التحقق الفوري عبر الإضاءة النافذة من وجود فقاعة تحت مخاطية موضعية مملوءة بالسائل (وذمة ملتحمية) فوق الحيز تحت الملتحمة الجفنية المستهدف دون حدوث ثقب في الصلبة، أو نزيف في الأنسجة، أو إصابة في غدد ميبوميوس (الشكل 1C)، بالإضافة إلى التحقق البيومتري الطولي من الاستطالة المحورية المتزامنة (Δ AL > 0.15 mm في الفئران؛ >0.40 mm في الجرذان) مصحوبة بانزياح انكساري قصير النظر (Δ Refraction < −1.0 D) في اليوم 21 مقارنة بالمجموعات الضابطة المعالجة بالمركبة. وعلى العكس من ذلك، تم تحديد النتائج غير الناجحة أو دون المستوى من خلال أنماط فشل تقنية وفسيولوجية محددة. أدى الفشل التقني—مثل الارتجاع المبكر للسائل عند سحب الإبرة أو الاختراق غير المقصود للأنسجة العميقة للجفن/المحجر—إلى تكوين فقاعة ضئيلة أو غائبة، مما أدى إلى احتجاز دوائي غير كافٍ وفشل في تحفيز الانزياحات قصيرة النظر؛ وقد تم توثيق الحيوانات التي أظهرت تسرباً مستمراً واستبعادها وفقاً للخطوة 3.8.1 من البروتوكول. بالإضافة إلى ذلك، تسببت مضاعفات سطح العين الناتجة عن وضع الإبرة بشكل خاطئ وعميق أو الشد الميكانيكي المفرط في حدوث نزيف موضعي تحت الملتحمة أو صدمة قرنية، مما أدى إلى استجابات التهابية مربكة. كما لوحظت نتائج نمطية دون المستوى أثناء تقييمات الاستجابة للجرعة، حيث أدى إعطاء تركيزات أعلى من العتبة (على سبيل المثال، 500 pg/eye في الفئران) إلى استجابة مخففة على شكل حرف U مع انخفاض في الاستطالة المحورية، مما يؤكد المتطلب الفسيولوجي لتحسين الجرعة بدقة. وقد ضمن الاحتجاز الدوائي الموضعي المتحقق منه بموجب هذه المعايير الموحدة استهدافاً عالي الدقة للأنسجة من أجل التحليلات البيومترية والجزيئية اللاحقة.
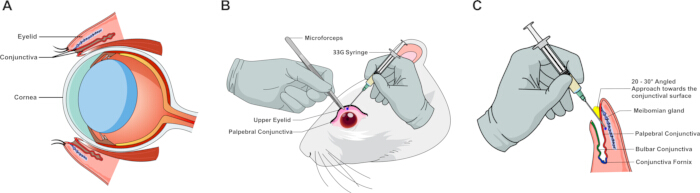
الشكل 1: المعالم التشريحية وتوضيح تخطيطي لإجراء الحقن تحت الملتحمة في القوارض. (A) مقطع عرضي سهمي لعين القارض يوضح المعالم التشريحية الأساسية، بما في ذلك الجفن، والقرنية، وكيس الملتحمة، والحيز تحت الملتحمة المستهدف. (B) توضيح جراحي لتثبيت الأنسجة وكشف ملتحمة الجفن باستخدام الملاقط الدقيقة؛ تشير النقطة الزرقاء إلى موقع إدخال الإبرة المستهدف للحقن الدقيق باستخدام سرنجة مقاس 33-gauge. (C) مخطط عالي التكبير يوضح توجيه الإبرة ومسار الإدخال بالنسبة لسطح ملتحمة الجفن، وقبو الملتحمة، والهياكل العينية الكامنة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
فحص نظائر TGF-β في الجرذان ومعايرة الاستجابة للجرعة من TGF-β2 في الفئران لدراسة الاستطالة المحورية
أُجريت التجارب في مجموعات تجريبية متتالية ومستقلة تشمل مجموعات فحص الجرعة (الشكل 2) ومجموعات التحقق الأولية (الشكل 3). وقِيست المعلمات الثنائية عبر المجموعات، مع اعتبار الحيوانات الفردية (N) كمكرر بيولوجي أساسي. وتمت مراعاة الاعتمادات المتبادلة بين العينين (العين اليمنى OD مقابل العين اليسرى OS في الحيوان نفسه) باستخدام تحليل التباين للقياسات المتكررة ثنائي الاتجاه (two-way repeated-measures ANOVA) أو نماذج التأثيرات المختلطة، حسبما كان مناسباً. وتُعرض البيانات المستمرة كمتوسط ± SD. كما قُيمت الفروق بين مجموعات الضبط والمجموعات المعالجة باستخدام اختبارات Student's t> ثنائية الذيل، أو تحليل التباين أحادي الاتجاه (one-way ANOVA)، أو تحليل التباين للقياسات المتكررة ثنائي الاتجاه، حسبما كان مناسباً. واعتُبرت القيمة p < 0.05 ذات دلالة إحصائية.
لتحديد أكثر الأشكال الإسوية فاعلية لعامل النمو التحويلي-بيتا (TGF-β) ووضع نظام جرعات أمثل لتحفيز الاستطالة المحورية، تم تقييم آثار الحقن المتكرر تحت الملتحمة في مجموعات من الجرذان والفئران من خط الأساس (اليوم 0) وحتى اليوم 21 (الشكل 2). وقد أُجريت التسجيلات البيومترية باستخدام نظام التقسيم على مدار يومين لمنع التداخلات الناتجة عن التخدير.
تم في البداية فحص ثلاثة أشكال متباينة من البروتين البشري المؤتلف TGF-β (وهي TGF-β1 وTGF-β2 وTGF-β3) في مجموعة الجرذان بتركيز موحد قدره 500 pg/eye (الشكل 2A). وكشف تحليل التباين أحادي الاتجاه (One-way ANOVA)، متبوعاً باختبارات المقارنات المتعددة البعدية (post hoc)، أن جميع الأشكال المتباينة الثلاثة حفزت نمو الجزء الخلفي من العين بشكل ملحوظ مقارنة بمجموعة التحكم التي عولجت بالمادة الناقلة (vehicle) على مدار فترة الـ 21 يوماً. وبينما عزز كل من TGF-β1 (0.442 ± 0.042 mm) وTGF-β3 (0.454 ± 0.049 mm) استطالة محورية ملحوظة (p < 0.05 وp < 0.01 مقابل مجموعة التحكم التي بلغت 0.328 ± 0.071 mm، على التوالي)، أحدث TGF-β2 أكبر زيادة في الطول المحوري (0.486 ± 0.074 mm) وأظهر أعلى دلالة إحصائية (p < 0.001)، مما يجعله المحفز الأكثر فعالية للنمط الظاهري لقصر النظر.
بناءً على نتائج الفحص في الجرذان، تم إجراء معايرة للاستجابة للجرعة من TGF-β2 في مجموعة الفئران، حيث تم اختبار ثلاثة تركيزات: 250 و375 و500 pg/eye (الشكل 2B). وأدى توصيل TGF-β2 تحت الملتحمة إلى ظهور ملف استجابة للجرعة على شكل حرف U مقلوب. حيث حققت الجرعة الأدنى (250 pg/eye) التسارع الأكثر أهمية في الاستطالة المحورية مقارنة بمجموعات التحكم التي تلقت المركب الناقل (0.177 ± 0.038 mm مقابل 0.044 ± 0.011 mm؛ p < 0.0001). أما عند الجرعات الأعلى (375 و500 pg/eye)، فقد تضاءل مقدار التغيير في الطول المحوري تدريجياً، رغم أنه ظل أعلى بشكل ملحوظ من مجموعات التحكم (0.123 ± 0.029 mm؛ p < 0.001 و0.095 ± 0.024 mm؛ p < 0.01، على التوالي).
تؤسس هذه البيانات مجتمعة لنظام حقن تحت الملتحمة أسبوعياً بجرعة 500 pg/eye للجرذان و 250 pg/eye للفئران كمعايير مثلى للاستقصاءات البنيوية والجزيئية اللاحقة.
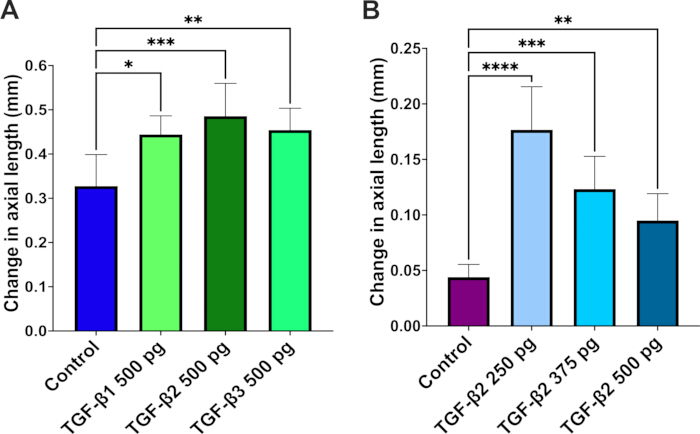
الشكل 2فحص اختيار الجرعة لعامل النمو التحويلي-β (عامل النمو التحويلي-βتأثير النظائر والتركيزات على طول المحور في عيون الجرذان والفئران. (Aالتغير في طول المحور لدى الجرذان (مجموعة الفرز الأولي)، والذي حُسب على أنه الفرق بين القيمة المرجعية (اليوم 0، قبل الحقنة الأولى) والنقطة النهائية (اليوم 21)، بعد ثلاث حقنات متتالية تحت الملتحمة من TGF-β1، عامل النمو المحول بيتا (TGF-β)β2، أو TGF-β3 (بجرعة 500 بيكوغرام/عين تم إعطاؤها في الأيام 0 و7 و14)، مقارنة بالمجموعات الضابطة التي عولجت بالمادة الناقلة. (Bالتغير في طول المحور في الفئران (مجموعة فحص الجرعة)، والمحسوب كفرق بين القيمة المرجعية (اليوم 0) واليوم 21، بعد ثلاث حقنات متتالية تحت الملتحمة من TGF-βبتركيزات ثلاثة متميزة (250 أو 375 أو 500 بيكوجرام/عين، أُعطيت في الأيام 0 و7 و14)، مقارنة بمجموعة ضابطة عولجت بالمركب الحامل. تُمثل البيانات كمتوسط ± الانحراف المعياري (N = 5 حيوانات/مجموعة، وهو ما يمثل 10 عيون لكل مجموعة). تم تقييم الدلالة الإحصائية باستخدام تحليل التباين أحادي الاتجاه (one-way ANOVA) متبوعاً باختبارات المقارنات المتعددة البعدية (post hoc multiple comparisons)؛ *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001 مقابل مجموعة الضابطة الحاملة للمركب. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تؤدي حقن TGF-β2 المتكررة تحت الملتحمة إلى استطالة المحور العيني وتحولات في قصر النظر لدى الجرذان والفئران
لتقييم التأثير القياس الحيوي للتوصيل المتكرر لـ TGF-β2 تحت الملتحمة (3 حقنات أسبوعياً)، تم رصد التغيرات الطولية في طول المحور العيني والخطأ الانكساري من خط الأساس وحتى الأسبوع الثالث في كل من نماذج الجرذان والفئران (الشكل 3). وقد قلل بروتوكول التقسيم لمدة يومين (تسجيل الحالة الانكسارية في اليوم 20، يليه التصوير بالموجات فوق الصوتية B-scan في اليوم 21) من الآثار الاصطناعية المحتملة للتخدير والإجهاد العيني. وأظهر كلا النوعين تحولات نمطية تتفق مع تطور قصر النظر التجريبي بعد هذا النظام متعدد الجرعات.
في مجموعة الجرذان، أظهرت الحيوانات التي تلقت حقناً متكررة تحت الملتحمة من TGF-β2 بجرعة 500 pg/eye زيادة أكبر بكثير في الطول المحوري على مدار فترة 21 يوماً مقارنة بمجموعة التحكم التي تلقت المادة الناقلة (0.466 ± 0.045 mm مقابل 0.388 ± 0.032 mm؛ p < 0.01؛ الشكل 3A). وقد صاحب هذا الاستطالة تحولاً قصراً ملحوظاً في الخطأ الانكساري (p < 0.05؛ الشكل 3B). وبينما أظهرت العيون في مجموعة التحكم بالمادة الناقلة انزياحاً طفيفاً متوقعاً نحو طول النظر (+0.31 ± 0.93 D)، انتقلت العيون المعالجة بـ TGF-β2 إلى حالة انكسارية مصابة بقصر النظر (−1.38 ± 0.91 D).
بالاتساق مع بيانات الجرذان، أظهرت الفئران التي عولجت بـ 250 pg/eye من TGF-β2 أيضًا تغيرات هيكلية وانكسارية واضحة. فقد تعزز الاستطالة المحورية بشكل ملحوظ في الفئران المعالجة بـ TGF-β2 مقارنة بمجموعات التحكم التي تلقت المركب الحامل (0.197 ± 0.012 mm مقابل 0.110 ± 0.014 mm؛ p < 0.0001؛ الشكل 3C). علاوة على ذلك، أدت هذه الاستطالة الهيكلية إلى تحول قصير النظر بشكل ملحوظ (p < 0.05؛ الشكل 3D)، مما عكس بفعالية الانكسار بعيد النظر الطبيعي الملاحظ في فئران التحكم (+2.25 ± 1.77 D) إلى نمط قصير النظر (−1.58 ± 0.63 D).
للتحقق من تماثل الاستجابة بين العينين والتأكد من أن تجميع قياسات العينين الثنائية لا يتسبب في تحيز إحصائي، تم تقييم ديناميكيات الاستطالة المحورية بشكل منفصل للعين اليسرى (OS, n = 5) والعين اليمنى (OD, n = 5) ضمن كل مجموعة (Supplementary Figure 1). وفي كل من الجرذان (Supplementary Figure 1A) والفئران (Supplementary Figure 1B)، لم يُلاحظ أي فرق ذو دلالة إحصائية بين العينين OS و OD سواء في مجموعات التحكم التي تلقت المركب الناقل (vehicle-control) أو المجموعات المعالجة بـ TGF-β2، مما يؤكد تماثل ديناميكيات الاستجابة عبر العينين. علاوة على ذلك، أظهرت كل من العينين OS و OD في الحيوانات المعالجة بـ TGF-β2 استطالة محورية متسقة وقوية مقارنة بمجموعات التحكم المقابلة لها (p < 0.05 للجرذان؛ p < 0.0001 للفئران)، مما يدعم صحة الاعتماد على القياسات الثنائية في التحليل البيومتري الأساسي.
تُظهر هذه النتائج مجتمعة أن الإعطاء المتكرر لـ TGF-β2 تحت الملتحمة يحفز بفعالية النمو الخلفي للعين وما يصاحبه من تحول انكساري قريب النظر في كلا نموذجي القوارض (الشكل 3 والشكل التكميلي 1).
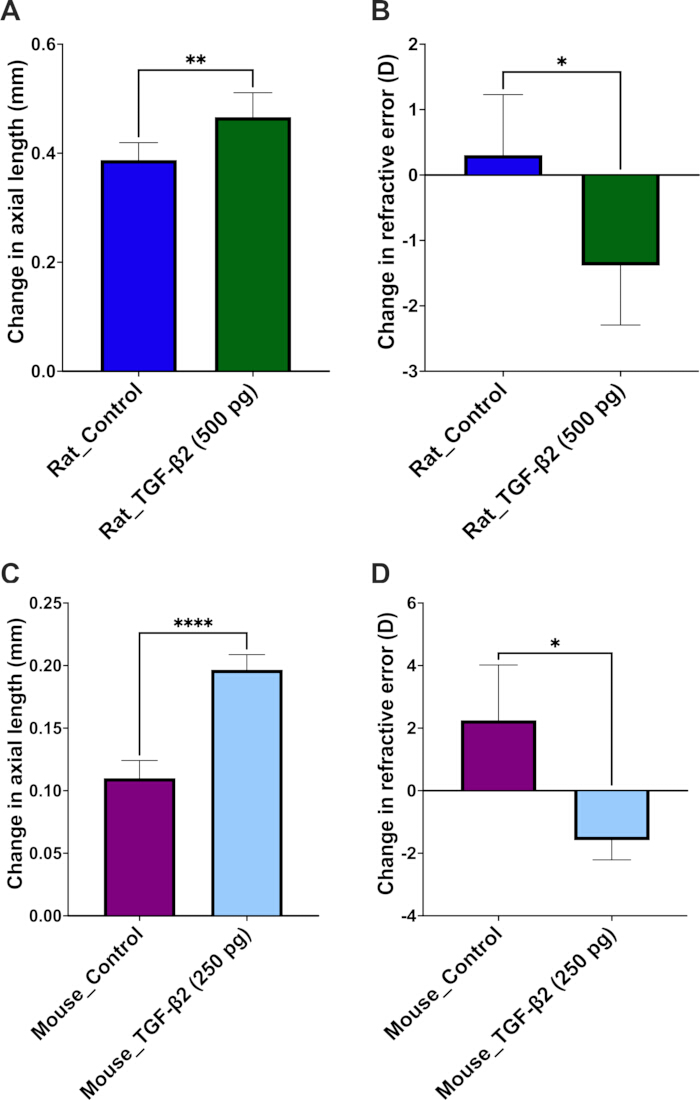
الشكل 3: التحقق الأولي من صحة TGF-βتأثيران على الاستطالة المحورية والخطأ الانكساري في مجموعات مستقلة من الجرذان والفئران. (Aالتغير في طول المحور في الجرذان، والذي حُسب كفرق بين القيمة المرجعية ونقطة النهاية النهائية في الأسبوع الثالث في العيون التي تلقت حقن TGF-β تحت الملتحمة.β2 (500 بيكوغرام/عين تُعطى بالتتابع في الأيام 0 و7 و14) أو ضابط ناقل. (Bتغير الخطأ الانكساري في عيون الجرذان نفسها، مما يوضح حدوث إزاحة قصيرة النظر ذات دلالة إحصائية في مجموعة TGF-βالمجموعة المعالجة بـ 2 مقارنة بمجموعة الضبط التي تلقت الناقل. (كربون(تغير في طول المحور في الفئران (مجموعة تحقق أولية مستقلة)، ويُحسب كفرق بين خط الأساس ونقطة النهاية النهائية في الأسبوع الثالث في العيون التي تلقت TGF- تحت الملتحمة)β٢ (٢٥٠ بيكوجرام/عين تُعطى في الأيام ٠ و٧ و١٤) أو مجموعة ضابطة بالناقل. (دتغير في الخطأ الانكساري في عيون الفأر نفسها، مما يكشف عن إزاحة ديوبترية سالبة مقابلة تحت ظروف TGF- المثلىβ2 الحث. تُعرض البيانات في شكل متوسط ± الانحراف المعياري (N = 5 حيوانات/مجموعة، ما يمثل 10 عيون لكل مجموعة). وقد تم تقييم الدلالة الإحصائية بدقة باستخدام اختبار t غير المقترن ثنائي الذيل ت-الاختبارات؛ *p < 0.05, **p < 0.01, ****p < 0.0001 مقابل مجموعة التحكم بالمركبة المناظرة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
إعطاء TGF-β2 تحت الملتحمة يزيد من تعبير MMP2 في الصلبة أثناء تطور قصر النظر التجريبي
لتقييم إعادة تشكيل الأنسجة النهائية على طول المحور الشبكي الصلبوي، تم تقييم تعبير ميتالوبروتياز المصفوفة 2 (MMP2) في المقاطع العرضية للصلبة بعد إعطاء TGF-β2 تحت الملتحمة (الشكل 4). أظهر تحليل التألق المناعي الكمي للمقاطع العينية الخلفية في نموذج الجرذ زيادة معنوية في مستويات بروتين MMP2 داخل سدى الصلبة في العيون المعالجة بـ TGF-β2 (500 pg/eye) في اليوم 21 مقارنة بمجموعات التحكم التي تلقت المركب الناقل (p < 0.0001؛ الشكل 4A، B).
تمركزت إشارة فلورية بارزة لـ MMP2 في جميع أنحاء المصفوفة الصلبية الواقعة تحت ظهارة صبغة الشبكية (RPE) وطبقات المشيمية، مما يؤكد حدوث إعادة تشكيل موضعية للمصفوفة خارج الخلية (ECM) المرتبطة بـ MMP2 في الغلاف العيني الخارجي أثناء تطور قصر النظر التجريبي. وقد دفعت هذه التغيرات الهيكلية في الصلبة إلى إجراء مزيد من الاستقصاء حول التغيرات الجزيئية المسببة في الشبكية المجاورة.
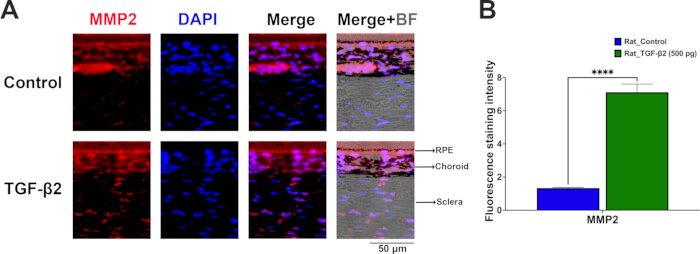
الشكل 4: الإعطاء تحت الملتحمة لـ TGF-β2 يزيد من تعبير MMP2 في صلبة عين الجرذ. (A) صور ممثلة للتألق المناعي للمقاطع العرضية الخلفية للعين تظهر تعبير MMP2 الصلبي (باللون الأحمر) في الجرذان مجموعة التحكم (vehicle-control) والجرذان المعالجة بـ TGF-β2 (بجرعة 500 pg/eye) في اليوم 21. صُبغت نوى الخلايا بـ DAPI (باللون الأزرق). يحدد تراكب الحقل المضيء (Merge+BF) الحدود التشريحية لـ RPE، والمشيمية، والصلبة. شريط المقياس = 50 µm. (B) تحليل كمي لشدة تلوين التألق يؤكد زيادة معنوية في تعبير MMP2 الصلبي في عيون الجرذان المعالجة بـ TGF-β2. البيانات معروضة كمتوسط ± SD (N = 3 مكررات بيولوجية مستقلة لكل مجموعة، عين واحدة لكل حيوان). تم تقييم الدلالة الإحصائية باستخدام اختبار t-test غير مقترن ذو طرفين؛ ****p < 0.0001 مقارنة بمجموعة التحكم. الاختصارات: RPE، الظهارة الصبغية الشبكية؛ BF، الحقل المضيء. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
يؤدي تحفيز TGF-β2 إلى زيادة تنظيم MMP2 والبروتينات المرتبطة بالجسيم الالتهابي في شبكيتي الجرذ والفأر
لتقصي التغيرات الجزيئية اللاحقة الناجمة عن الحقن المتكرر تحت الملتحمة، أُجري صبغ بالفلورة المناعية على مقاطع عينية خلفية من جرذان Brown Norway وفئران C57BL/6 في اليوم 21 (الشكل 5A–D). أُجريت جميع التقييمات على مقاطع شبكية سهمية محاذية بدقة لرأس العصب البصري لضمان اتساق التوجه المكاني. وكشف التحليل الكمي أن الإعطاء الأسبوعي لـ TGF-β2 أحدث تغييراً ملحوظاً في أنماط تعبير بروتينات محددة عبر صفائح الشبكية في كلا النوعين مقارنة بمجموعات التحكم التي حُقنت بالمادة الناقلة (الشكل 5E،F).
في نموذج الجرذان، أدى إعطاء 500 pg/eye من TGF-β2 إلى زيادة معنوية في مستويات TGF-β2 في الشبكية (p < 0.0001؛ الشكل 5A،E). وصاحب هذا التنظيم التصاعدي ارتفاع في تعبير matrix metalloproteinase 2 (MMP2) (p < 0.0001؛ الشكل 5B،E)، مما يشير إلى إعادة تشكيل نشطة للمصفوفة خارج الخلوية. علاوة على ذلك، حفز العلاج بـ TGF-β2 شلال الالتهاب في الشبكية، وهو ما ثبت من خلال التنظيم التصاعدي لمستشعر الجسيم الالتهابي NLRP3 (p < 0.0001؛ الشكل 5C،E) والسيتوكين المحرض للالتهاب IL-1β (p < 0.0001؛ الشكل 5D،E).
وبالمثل، أظهرت الفئران التي عولجت بـ 250 pg/eye من TGF-β2 اتجاهات تصاعدية ثابتة في هذه المؤشرات الحيوية (الشكل 5F). حيث ارتفعت تعبيرات Retinal TGF-β2 بشكل ملحوظ (p < 0.01؛ الشكل 5A,F) وكذلك MMP2 (p < 0.001؛ الشكل 5B,F). كما تم تنشيط مسار الجسيم الالتهابي (inflammasome) في شبكية عين الفأر، مع زيادات ملحوظة في تعبير NLRP3 (p < 0.01؛ الشكل 5C,F) وتنظيم تصاعدي واضح لـ IL-1β (p < 0.0001؛ الشكل 5D,F) مقارنة بمستويات خط الأساس التي كانت شبه غير قابلة للكشف في مجموعة الضبط.
تُظهر هذه النتائج مجتمعة أن إعطاء TGF-β2 تحت الملتحمة يعزز محركات إعادة تشكيل المصفوفة التي يتوسطها MMP2 في الشبكية، وينشط مسار الجسيم الالتهابي NLRP3/IL-1β في الجزء الخلفي من الشبكية لدى كلا النوعين من القوارض.
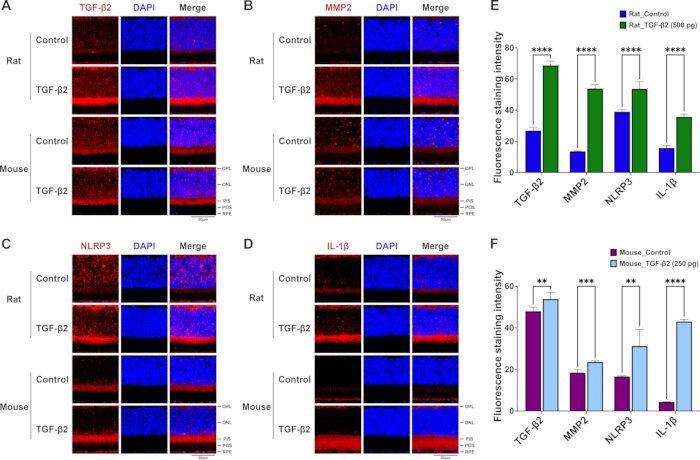
الشكل 5: تؤدي الإدارة المتكررة لـ TGF-β2 تحت الملتحمة إلى زيادة تنظيم تعبير MMP2 والبروتينات المرتبطة بالجسيم الالتهابي في الشبكية الخلفية للجرذان والفئران. (A–D) صور تمثيلية للتفلور المناعي لمقاطع سهمية من الشبكية لمجموعات الضبط والمجموعات المعالجة بـ TGF-β2 في الجرذان (اللوحات العلوية) والفئران (اللوحات السفلية)، مصبوغة لـ (A) TGF-β2، و(B) MMP2، و(C) NLRP3، و(D) IL-1β (باللون الأحمر)، مع صبغ مضاد للنوى بـ DAPI (باللون الأزرق). شريط المقياس = 50 µm. تعرض الحقول التمثيلية بشكل انتقائي التغيرات داخل طبقات الشبكية الخارجية، مما يسلط الضوء على تعبير بروتيني بارز يمتد من الطبقة الضفيرية الخارجية (OPL) وصولاً إلى معقد الظهارة الصباغية للشبكية (RPE) القاعدي. (E) قياس كمي لشدة صبغ التفلور لـ TGF-β2 وMMP2 وNLRP3 وIL-1β في شبكيات الجرذان من مجموعة الضبط والمجموعة المعالجة بـ TGF-β2 (500 pg). (F) قياس كمي لشدة صبغ التفلور لـ TGF-β2 وMMP2 وNLRP3 وIL-1β في شبكيات الفئران من مجموعة الضبط والمجموعة المعالجة بـ TGF-β2 (250 pg). البيانات معروضة كمتوسط ± SD (N = 3 مكررات بيولوجية مستقلة لكل مجموعة، عين واحدة لكل حيوان). تم تقييم الدلالة الإحصائية بدقة باستخدام اختبارات t غير المزدوجة ذات الذيلين؛ **p < 0.01, ***p < 0.001, ****p < 0.0001 مقارنة بمجموعة الضبط التي تلقت الناقل المقابل. الاختصارات: OPL، الطبقة الضفيرية الخارجية؛ ONL، الطبقة النووية الخارجية؛ PIS، القطع الداخلية للمستقبلات الضوئية؛ POS، القطع الخارجية للمستقبلات الضوئية؛ RPE، الظهارة الصباغية للشبكية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الشكل التكميلي 1: التماثل بين العينين وتقييم تجميع البيانات الثنائية بعد حقن TGF-β2 تحت الملتحمة. (أ) تحليل مقارن للتغيرات في طول المحور بين العينين اليسرى (OS, n = 5) واليمنى (OD, n = 5) في الجرذان التي تلقت مجموعة التحكم (vehicle control) أو حقن TGF-β2 الثنائي تحت الملتحمة (500 pg/eye). (ب) المقارنة المقابلة بين العينين اليسرى (OS, n = 5) واليمنى (OD, n = 5) في الفئران الخاضعة لمجموعة التحكم أو علاج TGF-β2 الثنائي (250 pg/eye). أكدت الاختبارات الإحصائية عدم وجود فرق معنوي بين العينين اليسرى واليمنى ضمن نفس مجموعة العلاج، مما يثبت أن تجميع القياسات الثنائية لا يؤدي إلى تحيز بين العينين. وفي الوقت ذاته، أظهرت كل من العينين اليسرى واليمنى في الحيوانات المعالجة بـ TGF-β2 استطالة محورية معنوية مقارنة بمجموعات التحكم المقابلة لها. البيانات معروضة كمتوسط ± الانحراف المعياري SD (N = 5 حيوانات لكل مجموعة، تمثل 5 عيون يسرى و5 عيون يمنى لكل مجموعة). تم تقييم الدلالة الإحصائية باستخدام تحليل التباين ANOVA للمقاييس المتكررة ثنائي الاتجاه متبعاً باختبار Sidak’s post hoc؛ *p < 0.05، ****p < 0.0001 مقابل مجموعة التحكم المقابلة. الاختصارات: OS، العين اليسرى (oculus sinister)؛ OD، العين اليمنى (oculus dexter). يرجى النقر هنا لتحميل هذا الملف.
الشكل التوضيحي التكميلي 2: تقييم سلامة السلامة التركيبية للشبكية والوظيفة الكهرومغناطيسية بعد حقن TGF- تحت الملتحمةβ٢ الإعطاء. (Aصورة ممثلة لصبغة الهيماتوكسيلين والإيوسين (H&مقاطع عرضية سهمية للشبكية مصبوغة بـ (E)-stained من مجموعة الضبط ومجموعة TGF-ββالفئران المعالجة بـ 2 (250 بيكوغرام/عين) والجرذان المعالجة بـ 2 (500 بيكوغرام/عين) في اليوم 21، مما يظهر الحفاظ على بنية طبقات الشبكية عبر الأنواع (العدد = 3 مكررات بيولوجية مستقلة لكل مجموعة). أشرطة المقياس = 20 µm. (Bأشكال موجية تمثيلية لتخطيط كهربية الشبكية (ERG) في الظلام، سُجلت من الفئران في اليوم 21، وتقارن بين العيون الضابطة التي حُقنت بالمركبة (الخط الرمادي) وTGF-βالعيون المعالجة بـ 2 (الخط الأحمر). تؤكد ديناميكيات استجابة موجة-a وموجة-b المماثلة الحفاظ على استجابة الشبكية للضوء والسلامة الفيزيولوجية الكهربائية (العدد = 3 فئران لكل مجموعة، وهو ما يمثل 6 عيون لكل مجموعة). الاختصارات: GCL، طبقة الخلايا العقدية؛ INL، الطبقة النووية الداخلية؛ ONL، الطبقة النووية الخارجية. يرجى النقر هنا لتحميل هذا الملف.
المناقشة
تتمثل إحدى النتائج الملحوظة في هذه الدراسة في ظهور نمط استجابة للجرعة غير خطي على شكل حرف U مقلوب نتج عن تحفيز TGF-β2 في مجموعة الفئران، حيث أدت أدنى جرعة تم إعطاؤها (250 pg/eye) إلى حدوث أبرز استطالة محوريه (الشكل 2B). وتعد هذه الظاهرة ثنائية الطور سمة مميزة للعديد من مسارات إشارات السيتوكينات القوية، بما في ذلك عائلة TGF-β الفائقة29,30. قد تؤدي التركيزات العالية للغاية من TGF-β2 الخارجي إلى تشبع المستقبلات أو تحفيز حلقات تغذية راجعة سلبية داخل الخلية — مثل زيادة تنظيم العضو 7 من عائلة SMAD المثبطة (Smad7) أو عملية إدخال الخلايا بوساطة المستقبلات — مما يؤدي بالتالي إلى إضعاف الاستجابات البيولوجية اللاحقة31,32. كما تدعم بيانات التألق المناعي هذه النافذة الفارماكولوجية؛ فبينما أدت جرعة 250 pg في الفئران (و500 pg في الجرذان) إلى ارتفاع متوسط في احتجاز TGF-β2 في الشبكية، فقد أطلقت في الوقت ذاته سلسلة التهابية قوية لاحقة (الشكل 5F). وهذا يشير إلى أن عتبة الجرعة المنخفضة المثالية تقع ضمن نافذة فسيولوجية عالية الحساسية، مما يزيد من الفعالية المستهدفة في الأنسجة مع تجنب فقدان الحساسية الناجم عن الربيطة أو التثبيط الموضعي33. وبناءً على ذلك، تسلط هذه النتائج الضوء على ضرورة إجراء معايرة دقيقة للجرعة عند إنشاء نماذج قوارض قابلة للتكرار لقصر النظر المستحث كيميائياً.
بالمقارنة مع النماذج التقليدية لقصر النظر الناتج عن حرمان الشكل (FDM) أو قصر النظر الناجم عن عدسات عدم التركيز مفرط النظر (LIM) - والتي تتطلب أجهزة مخصصة وتكون عرضة لإزاحة العدسات، والانفصال الناتج عن التنظيف، ومضاعفات القرنية - يوفر البروتوكول تحت الملتحمة تحكماً دوائياً مباشراً وتكاليف معدات محدودة13,34. واتساقاً مع الأعمال السابقة التي أظهرت أن التوصيل حول العين يعدل إشارات TGF-β في الصلبة والشبكية35، توضح هذه البيانات الاستجابات البيولوجية للجزء الخلفي بعد الإعطاء تحت الملتحمة الأمامية لـ TGF-β2 (الشكل 4 والشكل 5). ويعزى هذا الاستهداف الخلفي الفعال إلى الحجم العيني الفريد وديناميكيات السوائل في القوارض الصغيرة. ونظراً للطول المحوري المدمج لعيون القوارض (~3 mm في الفئران و~6 mm في الجرذان)، فإن الإعطاء تحت الملتحمة يغمر نسبة كبيرة نسبياً من المستوى فوق الصلبة. وبدفع من النفاذية العالية عبر الصلبة والاستمرارية التشريحية لمساحة تحت تينون (sub-Tenon space)، قد تنتشر التركيبة المحقونة عبر الصلبة والمشيمية باتجاه القطب الخلفي. ومن الأهمية بمكان أن هذا المسار يرتبط بتأثيرات بيولوجية في أنسجة العين الخلفية مع تجنب المخاطر الشديدة لثقب المقلة وإصابة العصب البصري المتأصلة في حقن تحت تينون الخلفية العميقة أو الحقن داخل الجسم الزجاجي في القوارض الصغيرة. ويتجنب هذا النهج المربكات الميكانيكية والسلوكية للعدسات المثبتة على الرأس13,36، بالإضافة إلى المخاطر الموثقة لانفصال الشبكية والتهاب داخل المقلة المرتبط بالحقن داخل الجسم الزجاجي37,38. علاوة على ذلك، فإن تقسيم القياسات البيومترية إلى جلستين قصيرتين يحسن من النماذج التقليدية ذات الجلسة الواحدة. حيث يؤدي التعرض الطويل للتخدير تكراراً إلى اضطرابات عينية - مثل الساد التخديري في الفئران والإغلاق الجفني التلقائي في الجرذان - مما يضعف دقة قياسات الانكسار والطول المحوري39,40. ومن خلال فصل تقييمات الخطأ الانكساري (اليومان –1 و20) والطول المحوري (اليومان 0 و21)، تم تصميم البروتوكول لتقليل الإجهاد العيني التراكمي المحتمل والحفاظ على ظروف تصوير متسقة، مما قد يساعد في تخفيف التباين داخل التجربة. وللقضاء بشكل أكبر على المتغيرات المربكة المحتملة الناجمة عن التلوث المتبادل الجهازي - مثل الامتصاص الوعائي الجهازي أو النقل اللمفاوي الذي يؤثر على الأنسجة غير المستهدفة - وكذلك الاستجابات الودية في الجانب المقابل، تم تنفيذ تصميم صارم بين المبحوثين (between-subject design). ومن خلال إعطاء التحكم بالناقل ثنائياً أو rhTGF-β2 النشط ثنائياً داخل الحيوانات الفردية، يمنع هذا النموذج التلوث بين العينين مع ضمان تقييم دوائي قوي. وبشكل متسق، أكدت التحليلات البيومترية المنفصلة للعينين اليسرى واليمنى المقترنتين وجود تماثل عالٍ بين العينين، مما يؤكد أن تجميع البيانات الثنائية لم يؤدِ إلى انحياز إحصائي أو فسيولوجي عبر مجموعات العلاج (الشكل التكميلي 1).
يعيد هذا النموذج من القوارض محاكاة محور الالتهاب وإعادة تشكيل المادة الخلالية الذي يحفزه TGF-β2 بشكل فعال، وهو المحور الذي تم إثباته سابقاً في دراسات أجراها المؤلفون على الزبابة الشجرية وجرذان نوروي البنية21,41. وقد أظهرت التحقيقات السابقة للمؤلفين أن TGF-β أو TGF-β2 الخارجي أدى إلى تضخيم الالتهاب داخل العين — وتحديداً عبر تنشيط NF-κB و IL-1β — مع زيادة تعبير MMP2، واستنزاف كولاجين I في الصلبة، وتحفيز الاستطالة المحورية42,43. وعلى العكس من ذلك، فإن تثبيط نشاط المتممة والجسيم الالتهابي (inflammasome) عبر عامل تسريع تحلل المتممة (CD55) أدى إلى كبح كل من الالتهاب الموضعي وتطور قصر النظر41,44. كما تظهر سمات التهابية مزمنة مماثلة، تتميز بزيادة تنشيط MMP2 وفقدان كولاجين I اللاحق، في نماذج الحرمان من الشكل التقليدية وفي المرضى الذين يعانون من قصر النظر المرضي الشديد42,43,45,46. ومن الأهمية بمكان أن TGF-β (وتحديداً النمط الإنزيمي TGF-β2)، بدلاً من أن يعمل كمحفز أولي معزول أو عالمي يعمل بشكل موحد عبر جميع الأنسجة، يعمل كجسر إشارات يعتمد على السياق؛ حيث يربط إشارات الالتهاب في المراحل المبكرة في الشبكية/ظهارة صبغة الشبكية (RPE) — وتحديداً عبر تنشيط جسيم NLRP3 الالتهابي والمتممة — بالتنفيذ اللاحق في المادة الخلالية خارج الخلوية (ECM) للصلبة21,41. إن إدراك هذا الانتقال الزماني والمكاني يحل التناقضات الظاهرة في الدراسات السابقة فيما يتعلق بتعبير TGF-β، حيث تتغير ديناميكياته بين التضخيم الالتهابي الموضعي المبكر في الشبكية/RPE والتحلل المادي للمادة الخلالية بوساطة MMP في مراحل متأخرة في الصلبة47,48. وتحديداً، بينما يحدد التنفيذ الهيكلي لتحلل ECM الصلبة في النهاية الاستطالة الفيزيائية للعين (الشكل 4)، فإن النتائج الجزيئية تسلط الضوء على الشبكية الخارجية و RPE كأصل أساسي لإشارات المنبع (الشكل 5). وفي حين اعتمدت الدراسة الحالية حصرياً على التألق المناعي الكمي (IF) لرسم التوزيع المكاني في الموقع والزيادة الصفائحية لهذه العلامات، فإن الديناميكيات العامة للجينات والبروتينات (عبر RT-qPCR و Western blot، على التوالي) لشلال p-NF-κB/IL-1β/TNF-α/NLRP3 الشبكي هذا، تحت نماذج تحفيز TGF-β2 متطابقة، قد تم إثباتها بشكل مستقل في الدراسات السابقة للمؤلفين46,49. حيث يقوم TGF-β2 تحت الملتحمة بتنشيط شلال NLRP3/IL-1β–MMP2 داخل الشبكية/RPE، والذي ينتشر عبر المحور الشبكي-المشيمي-الصلبي لتحفيز تعبير MMP2 في الصلبة وإعادة تشكيل المادة الخلالية في المصب. وتدعم هذه المتوازيات بقوة الدور المركزي للالتهاب منخفض الدرجة وإعادة تشكيل المادة الخلالية خارج الخلوية (ECM) للصلبة بوساطة MMP في تسريع نمو العين.
على الرغم من هذه المزايا الإجرائية، فإن هناك عدة محددات في البروتوكول الحالي تستوجب النظر. أولاً، وبما أنه نموذج دوائي بحت يعتمد على إيصال السيتوكينات الخارجية، فإن هذا النهج يتجاوز عدم التركيز البصري ومسارات نقل إشارات الضوء من الشبكية إلى الصلبة التي تميز نماذج قصر النظر الناتج عن الحرمان من الشكل (FDM) أو قصر النظر الناجم عن العدسة (LIM) التقليدية.16,50وبناءً على ذلك، فبينما تُعد هذه الطريقة مناسبة للغاية لاستهداف الشلالات الكيميائية الحيوية اللاحقة -وتحديداً محور إعادة تشكيل MMP2 الالتهابي- إلا أنها تُكمّل النماذج التي تبحث في المعالجة البصرية الأولية أو التلاعبات البصرية ولا تحل محلها.51ثانياً، على الرغم من أن الحقن تحت الملتحمة يتجنب السمية الجهازية ومخاطر الحقن داخل الجسم الزجاجي، إلا أن الحاجة إلى حقن دقيقة متكررة (مرة واحدة أسبوعياً لمدة 3 أسابيع) تسبب اضطراباً ميكانيكياً موضعياً عابراً وتعرضاً وجيزاً للتخدير، مما قد يؤثر بشكل طفيف على التوازن الداخلي لسطح العين إذا لم يتم التنفيذ بدقة صرامة.38,52يعتمد تحقيق تحريض قابل للتكرار لقصر النظر التجريبي عبر هذا المسار بشكل كبير على التنفيذ التقني الدقيق أثناء الإيصال تحت الملتحمة. ويتمثل المحدد التقني الأساسي للنجاح في الإدخال الصحيح والمائل والسطحي تحت الملتحمة الجفنية لإنشاء فقاعة تحت مخاطية (وذمة ملتحمية) موضعية ومحددة جيداً. ويضمن التحقق عبر الإضاءة النافذة الفورية بقاء السائل ضمن مستوى الأنسجة، مما يمنع ثقب الصلبة غير المقصود، أو التسرب خارج المدار العميق، أو تمزق الأوعية الدموية الدقيقة. ولمنع ارتداد السائل أو التسرب النشط بعد الحقن — وهو نمط فشل شائع يؤثر على الجرعات الدوائية الفعالة — يجب إبقاء الإبرة المجهرية في مكانها لمدة 5 ثوانٍ بعد الإيصال قبل سحبها ببطء وثبات تحت الرقابة البصرية. وفي الحالات التي يحدث فيها ارتداد فوري، أو يكون ارتفاع الفقاعة غير كافٍ، أو يحدث نزيف نسيجي غير مقصود عند السحب، يجب توثيق الحيوانات واستبعادها وفقاً لمعايير محددة مسبقاً لتجنب التباين المربك. ويضمن الالتزام بهذه المعايير التقنية الصارمة احتفاظاً مستهدفاً عالي الدقة بالدواء في الجزء الخلفي مع تقليل صدمات سطح العين. وعلاوة على ذلك، بينما قد تبدو الحالة الانكسارية المطلقة (على سبيل المثال، -1.58 ديوبتر في الفئران و -1.38 ديوبتر في الجرذان) في نماذج القوارض متواضعة مقارنة بقوتها الديوبترية الأساسية العالية، فإن صافي تحولات قصر النظر بالنسبة لمجموعات التحكم التي تلقت الناقل تكون جوهرية (+3.83 ديوبتر في الفئران و +1.69 ديوبتر في الجرذان؛ وكلاهما p < (0.05) ومتوافقة تماماً مع الاستطالة المحورية الهيكلية وزيادة تنظيم MMP2 في الصلبة في المصب عبر كلا النوعين. والأهم من ذلك، أن تقييمات السلامة والتحمل الفسيولوجي أكدت الطبيعة غير السامة للخلايا لنمط الإعطاء هذا بجرعة منخفضة تحت الملتحمة. المقاطع العرضية النسيجية (H&؛ هـ) أظهرت بنية طبقات الشبكية حفظاً جيداً في كل من الفئران والجرذان، بينما أظهر تخطيط كهربائية الشبكية (ERG) تحت ظروف الإضاءة الخافتة (scotopic) في اليوم 21 استجابات سليمة للموجة-أ (a-wave) والموجة-ب (b-wave) دون وجود تأخير في الزمن الضمني أو انخفاض في السعة (الشكل التكميلي 2)، مما يؤكد أن TGF- الموضعي-βيؤدي الإيصال الثاني إلى استطالة محورية مستهدفة دون التسبب في اعتلال شبكية بنيوي أو ضعف في الاستجابة الكهروفسيولوجية. ثالثاً، ترصد تقييمات النهاية عند الأسبوع الثالث الاستجابات الالتهابية الحادة إلى تحت الحادة وإعادة تشكيل المصفوفة؛ وهناك حاجة إلى دراسات طويلة الأمد لتحديد ما إذا كانت هذه التغيرات المظهرية تستمر بعد العلاج أو تظهر ديناميكيات تعافٍ بعد فترة التخلص من الدواء.41,53وأخيراً، في حين أن تحليلات الحركية الدوائية المباشرة ونفاذية الأنسجة العينية لـ TGF- الخارجي...βكان هناك أمران خارج نطاق دراسة التحقق من صحة هذا النموذج، وهما التحولات البيومترية القوية والمتسقة (الاستطالة المحورية وتغير الخطأ الانكساري)، إلى جانب التنشيطات الجزيئية المحددة للشبكية/الظهارة الصباغية للشبكية التي أثبتتها الدراسات السابقة التي أجراها المؤلفون46,49، ودعم العمل البيولوجي الفعال في البنى العينية الخلفية. وتتضمن الدراسات المستقبلية المزيد من توصيف التعبير البروتيني (مثل لطخة ويسترن)، أو تقنية تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (RT-qPCR)، أو استخدام TGF- المسمى بـβسيعمل تتبع هذه المادة على توضيح توزيعها الدقيق في الأنسجة وحركية تصفيتها بشكل أكبر. وسيرشد إدراك هذه الحدود الباحثين في اختيار هذا النموذج لإجراء الفحص العلاجي المناسب والتحقق من الآلية.
من خلال إثبات أن TGF-β2 تحت الملتحمة ينشط محور NLRP3/IL-1β–MMP2 داخل الشبكية الخارجية وظهارة صباغ الشبكية (RPE) في كل من جرذان نورواي البنية وفئران C57BL/6، يوفر هذا البروتوكول إطاراً محدداً صيدلانياً يثبت صحة مسارات الالتهاب وإعادة تشكيل المصفوفة عبر أنواع القوارض. وبناءً على ذلك، يعمل النموذج المستحث بواسطة TGF-β2 كمنصة موثوقة لتوحيد استحثاث الاستطالة المحورية، وتحليل شلالات الإشارات الشبكية-الصلبية، وفحص التدخلات قبل السريرية التي تستهدف TGF-β2، أو مكونات المتممة، أو الجسيم الالتهابي (inflammasome)، أو MMP2.
الإفصاحات
ليس لدى المؤلفين أي إفصاحات أو تضاربات في المصالح للإعلان عنها فيما يتعلق بهذه الدراسة. استُخدمت أدوات اللغة المدعومة بالذكاء الاصطناعي حصرياً لتحرير القواعد النحوية وتحسين بناء الجمل الإنجليزية أثناء إعداد المخطوطة. ولم تُستخدم أي أدوات ذكاء اصطناعي توليدية في الحصول على البيانات، أو معالجة الصور، أو التحليل الكمي، أو إنشاء الأشكال.
شكر وتقدير
أُجريت التجارب وتحليل البيانات جزئيًا من خلال استخدام المرافق المركزية للأبحاث الطبية، مكتب الأبحاث. &؛ التطوير، في جامعة الصين الطبية، تايتشونغ، تايوان، جمهورية الصين. يتوجه المؤلفون بخالص الشكر إلى المركز الوطني للنماذج الحيوية (NCB, NIAR, Taiwan) وشركة BioLASCO Taiwan Co., Ltd. على دعمهم الفني الاستثنائي في خدمات التربية التعاقدية وتوريد الحيوانات. بالإضافة إلى ذلك، تم تصميم وتخصيص المخطط الهيكلي وإجراءات الجراحة المجهرية الموضحة في الشكل 1 باستخدام أصول متجهة عالية الدقة من Mind the Graph (mindthegraph.com, Premium License)، وتم تجميعها وتنقيتها باحترافية باستخدام Affinity Designer (Serif Europe Ltd.). تم توفير تمويل البحث جزئياً من قبل المجلس الوطني للعلوم والتكنولوجيا، تايوان، جمهورية الصين (NSTC-112-2314-B-039-029; 115-2320-B-039-056)، ومستشفى جامعة الصين الطبية، تايتشونغ، تايوان (DMR-114-091; DMR-115-117)، وجامعة الصين الطبية، تايتشونغ، تايوان (CMU114-MF-78; CMU-114-ASIA-10). لم يكن لممولي البحث أي دور في تصميم الدراسة، أو جمع البيانات وتحليلها، أو قرار النشر، أو إعداد المخطوطة. كما لم يكن للجهة الراعية أو المنظمة الممولة أي دور في تصميم هذا البحث أو إجرائه.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| جهاز قياس الانكسار الضوئي بالأشعة تحت الحمراء الآلي | شركة StriaTech GmbH (Tüبينجن، ألمانيا) | ST-PR.01 | مع إعدادات مسبقة مخصصة لأنواع الفئران/الجرذان |
| محلول ملحي متوازن (BSS) | شركة Alcon Laboratories, Inc. (فورت وورث، الولايات المتحدة الأمريكية) | نظرًا لعدم توفر نص مصدر للترجمة، يرجى تزويدي بالنص الذي ترغب في ترجمته من الإنجليزية إلى العربية وفقًا للمعايير العلمية والمهنية المحددة. | محلول ري داخل العين معقم |
| ألبومين المصل البقري (BSA) | Sigma-Aldrich (سانت لويس، الولايات المتحدة الأمريكية) | A3059 | مسحوق مجفف بالتجميد، 0.1% جزء حجمي |
| جرذان براون نورواي (BN) | شركة BioLASCO Taiwan Co., Ltd. و/أو المركز الوطني للنماذج الحيوية (National Center for Biomodels) | جرذان النرويج البنية (Brown Norway Rats) | |
| فئران C57BL/6 (B6) | شركة BioLASCO Taiwan Co., Ltd. و/أو المركز الوطني للنماذج الحيوية (National Center for Biomodels) | مركز الموارد الحيوية الوطنية، تايوان (NCB) تفاصيل الحيوانات كائن حي: الفأر السلالة: C57BL/6 الجنس: ذكر/أنثى العمر: 6-8 أسابيع الوزن: 20-25 جرام الوضع الصحي: خالٍ من مسببات الأمراض النوعية (SPF) المصدر: مُوفر من قبل NCB طريقة الحفظ: تربية حية وصف السلالة: سلالة نقية من الفئران المختبرية، تُستخدم على نطاق واسع في الأبحاث البيولوجية والطبية نظراً لخصائصها الجينية المستقرة.&معرف الشبكة = 3&الصفحة=0&النوع=1 | |
| محلول DAPI (1 مجم/مل) | Thermo Scientific (Thermo Fisher Scientific, Waltham, USA) | 62248 | يُستخدم بتخفيف تشغيلي بنسبة 1:500 للتألق المناعي. |
| إيثانول مطلق (≥99.5%) | J.T.Baker (Avantor Performance Materials, Radnor, USA) | يرجى تقديم النص المراد ترجمته. | درجة كاشف، 75% للشطف، 20%–١٠٠٪ للجفاف |
| جهاز إضاءة Fiber-Lite (بقوة 150 واط، وعنق وزي مزدوج) | Stoelting Co. (وود ديل، الولايات المتحدة الأمريكية) | لا ينطبق | مصدر ضوئي عالي الكثافة |
| ملاقط دقيقة ذات رؤوس رفيعة | Stephens Instruments (Lexington, USA) | S5-1375 | مستقيم، مسنن، مع دبوس توجيه |
| جل جينبول للعين | شركة Winston Medical Supply Co., Ltd. (تاينان، تايوان) | لا ينطبق | كربومير 0.2%، حماية القرنية |
| الجلسرول (البيولوجيا الجزيئية، ≥99.0%) | Sigma-Aldrich (سانت لويس، الولايات المتحدة الأمريكية) | G5516 | درجة كاشف مخبري، مصفوفة عمل بتركيز 50% |
| جسم مضاد ثانوي من الماعز ضد IgG (H+L) للأرانب، أليكسا فلور بلس 555 | Invitrogen (Thermo Fisher Scientific, Waltham, USA) | A32732 | يُستخدم بتخفيف تشغيلي بنسبة 1:800 في اختبار التألق المناعي. |
| نظام تخطيط كهربائية الشبكية متعدد الأنواع المحمول باليد (HMSERG) | OcuScience (هندرسون، الولايات المتحدة الأمريكية) | طراز 2000 (HMsERG-2000)، نظام تخطيط كهربائية الشبكية الوميضي للمجال الكامل للقوارض مع برنامج ERGView. | |
| هارتمان′مثبت ديفيدسون (Davidson's Fixative) | Sigma-Aldrich (سانت لويس، الولايات المتحدة الأمريكية) | H0290 | مزيج التثبيت السريع للهندسة العينية |
| مسبار الموجات فوق الصوتية عالي التردد | شركة ASUSTeK Computer Inc. (تايبيه، تايوان) | LU710LH | محمول باليد، بتردد 16 ميجاهرتز |
| إبرة حقن مجهري (33-G) | شركة Hamilton (رينو، الولايات المتحدة الأمريكية) | 7803-05 | نمط السن 4، زاوية شطب ضحلة |
| سرنجة الحقن المجهري (10 µL) | شركة Hamilton (رينو، الولايات المتحدة الأمريكية) | 80014 (#1701) | سرنجة ميكرولتر محكمة الغلق ضد الغازات |
| محلول Mydrin-P للعين | شركة Santen Pharmaceutical Co., Ltd. (أوساكا، اليابان) | لا ينطبق | 0.5% تروبيكاميد / 0.5% فينيل-إفرين |
| مصل ماعز طبيعي | Jackson ImmunoResearch Laboratories, Inc. (West Grove, USA) | 005-000-121 | تُستخدم كمحلول حجب بنسبة 10% للتألق المناعي. |
| برمجيات الحصول على بيانات مقياس انكسار العين الضوئي | شركة StriaTech GmbH (Tüبينغن، ألمانيا) | لم يتوفر نص للترجمة. يرجى تزويدي بالنص الذي ترغب في ترجمته. | المعالجة الآلية للمكافئ الكروي المتوسط |
| جسم مضاد أحادي النسيلة للأرنب مضاد لـ IL1 beta (HL1421) | GeneTex, Inc. (إيرفاين، الولايات المتحدة الأمريكية) | GTX636887 | يُستخدم بتخفيف تشغيلي بنسبة 1:500 في التألق المناعي. |
| جسم مضاد متعدد النسائل للأرنب المضاد لـ MMP2 | GeneTex, Inc. (إيرفاين، الولايات المتحدة الأمريكية) | GTX104577 | يُستخدم بتخفيف تشغيلي بنسبة 1:500 للفحص المناعي الفلوري. |
| جسم مضاد متعدد النسائل من الأرنب ضد NLRP3 | Abcam (كامبريدج، المملكة المتحدة) | ab214185 | تُستخدم بتخفيف تشغيلي بنسبة 1:400 في اختبار التألق المناعي. |
| جسم مضاد متعدد النسائل من الأرانب ضد TGF-beta 2 | AbboMax, Inc. (سان خوسيه، الولايات المتحدة الأمريكية) | 500-3784 | يُستخدم بتخفيف تشغيلي بنسبة 1:250 للتألق المناعي. |
| عامل النمو المحول بيتا البشري المؤتلف (Recombinant Human TGF-β)β1 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-21 | مسحوق مجفف بالتجميد، عالي النقاء |
| عامل النمو التحويلي بيتا البشري المؤتلف-β2 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-35 | مسحوق مجفف بالتجميد، عالي النقاوة |
| عامل النمو التحويلي بيتا البشري مأشوب (Recombinant Human TGF-β)β3 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-36 | مسحوق مجفف بالتجميد، عالي النقاوة |
| جل الموجات فوق الصوتية Aquasonic 100 المعقم | شركة .Parker Laboratories, Inc (فيرفيلد، الولايات المتحدة الأمريكية) | لا ينطبق | مصفوفة الاقتران الصوتي القياسية |
| برمجيات التصوير بالموجات فوق الصوتية | شركة ASUSTeK Computer Inc. (تايبيه، تايوان) | نظرًا لعدم وجود نص مصدر متاح للترجمة، يرجى تزويدي بالنص الإنجليزي الذي ترغب في ترجمته إلى اللغة العربية وفقًا للمعايير العلمية والأكاديمية المذكورة. | للتصوير المباشر بمسح B (B-scan) واستخدام أدوات القياس (calipers) |
المراجع
- Holden BA, et al. Myopia: a growing global problem with sight-threatening complications. Community eye health. 2015;28(90):35.
- Holden BA, et al. Global prevalence of myopia and high myopia and temporal trends from 2000 through 2050. Ophthalmology. 2016;123(5):1036-42.
- McMonnies CW. An examination of the relation between intraocular pressure, fundal stretching, and myopic pathology. Clinical and Experimental Optometry. 2016;99(2):113-9.
- Fledelius HC. Myopia and significant visual impairment: global aspects [Presentation]. Presented at: 7th International Conference on Myopia; Taipei, Taiwan; 1998.
- Park SC, Liebmann JM, Ritch R. Glaucoma in myopia. Pathologic Myopia: Springer; 2013. p. 283-92.
- Gale J, Ikuno Y. Ii. B. Myopic Vitreopathy. Vitreous: In Health and Disease: Springer; 2014. p. 113-29.
- Saw SM, Gazzard G, Shih-Yen EC, Chua WH. Myopia and associated pathological complications. Ophthalmic and Physiological Optics. 2005;25(5):381-91.
- Tkatchenko TV, Shen Y, Tkatchenko AV. Mouse Experimental Myopia Has Features of Primate Myopia. Investigative Ophthalmology & Visual Science. 2010;51(3):1297-303.
- Morgan IG, Ashby RS, Nickla DL. Form deprivation and lens-induced myopia: are they different? Ophthalmic Physiol Opt. 2013;33(3):355-61.
- Barathi VA, Boopathi VG, Yap EP, Beuerman RW. Two models of experimental myopia in the mouse. Vision Res. 2008;48(7):904-16.
- Zhao HL, Wang RQ, Wu MQ, Jiang J. Dynamic changes of ocular biometric parameters: a modified form-deprivation myopia model of young guinea pigs. Int J Ophthalmol. 2011;4(5):484-8.
- Wu XH, et al. Unaltered retinal dopamine levels in a C57BL/6 mouse model of form-deprivation myopia. Invest Ophthalmol Vis Sci. 2015;56(2):967-77.
- Faulkner AE, Kim MK, Iuvone PM, Pardue MT. Head-mounted goggles for murine form deprivation myopia. J Neurosci Methods. 2007;161(1):96-100.
- Wang Y, Zhang Y, Tian N. Cause and Management of Suture-related Ocular Complications after Buried-suture Double-eyelid Blepharoplasty. J Plast Reconstr Aesthet Surg. 2021;74(12):3431-6.
- Pang K, Lennikov A, Yang M. Hypoxia adaptation in the cornea: Current animal models and underlying mechanisms. Animal Model Exp Med. 2021;4(4):300-10.
- Schaeffel F, Feldkaemper M. Animal models in myopia research. Clinical and Experimental Optometry. 2015;98(6):507-17.
- Harper AR, Summers JA. The dynamic sclera: extracellular matrix remodeling in normal ocular growth and myopia development. Exp Eye Res. 2015;133:100-11.
- Jobling AI, Nguyen M, Gentle A, McBrien NA. Isoform-specific changes in scleral transforming growth factor-beta expression and the regulation of collagen synthesis during myopia progression. J Biol Chem. 2004;279(18):18121-6.
- Vranka JA, Kelley MJ, Acott TS, Keller KE. Extracellular matrix in the trabecular meshwork: intraocular pressure regulation and dysregulation in glaucoma. Exp Eye Res. 2015;133:112-25.
- Tien P-T, et al. Diacerein inhibits myopia progression through lowering inflammation in retinal pigment epithelial cell. Mediators of Inflammation. 2021;2021(1):6660640.
- Ku H, et al. The role of transforming growth factor beta in myopia development. Molecular immunology. 2024;167:34-42.
- Yin X, Ge J. The role of scleral changes in the progression of myopia: a review and future directions. Clinical Ophthalmology. 2025:1699-707.
- Schippert R, Brand C, Schaeffel F, Feldkaemper MP. Changes in scleral MMP-2, TIMP-2 and TGFβ-2 mRNA expression after imposed myopic and hyperopic defocus in chickens. Experimental eye research. 2006;82(4):710-9.
- Xin J, et al. Crosstalk between myopia and inflammation: a mini review. International journal of medical sciences. 2024;21(9):1589.
- Zhang K, et al. Elevated Transforming Growth Factor-β2 in the Aqueous Humor: A Possible Explanation for High Rate of Capsular Contraction Syndrome in High Myopia. Journal of Ophthalmology. 2016;2016(1):5438676.
- Zhang M, et al. Complement and local ocular inflammatory response: Chronic immune factors in myopia. Science Progress. 2025;108(3):00368504251383046.
- Meng L, et al. Aqueous Humour Cytokines as Predictors of Axial Elongation in High Myopia: A 2-Year Longitudinal Cohort Study. Clinical & Experimental Ophthalmology. 2026;54(6):756-768.
- Miller DA, et al. Murine transforming growth factor-β2 cDNA sequence and expression in adult tissues and embryos. Molecular Endocrinology. 1989;3(7):1108-14.
- Langer JC, Henckaerts E, Orenstein J, Snoeck HW. Quantitative trait analysis reveals transforming growth factor-beta2 as a positive regulator of early hematopoietic progenitor and stem cell function. J Exp Med. 2004;199(1):5-14.
- Shinar DM, Rodan GA. Biphasic effects of transforming growth factor-beta on the production of osteoclast-like cells in mouse bone marrow cultures: the role of prostaglandins in the generation of these cells. Endocrinology. 1990;126(6):3153-8.
- Heldin CH, Moustakas A. Signaling Receptors for TGF-β Family Members. Cold Spring Harb Perspect Biol. 2016;8(8).
- Zhao B, Chen YG. Regulation of TGF-β Signal Transduction. Scientifica (Cairo). 2014;2014:874065.
- Akhurst RJ. Targeting TGF-β Signaling for Therapeutic Gain. Cold Spring Harb Perspect Biol. 2017;9(10).
- Pardue MT, Stone RA, Iuvone PM. Investigating mechanisms of myopia in mice. Exp Eye Res. 2013;114:96-105.
- Cordeiro MF, Gay JA, Khaw PT. Human Anti-Transforming Growth Factor-β2 Antibody: A New Glaucoma Anti-Scarring Agent. Investigative Ophthalmology & Visual Science. 1999;40(10):2225-34.
- Guo ZV, et al. Procedures for Behavioral Experiments in Head-Fixed Mice. PLOS ONE. 2014;9(2):e88678.
- Jager RD, Aiello LP, Patel SC, Cunningham ET, Jr. Risks of intravitreous injection: a comprehensive review. Retina. 2004;24(5):676-98.
- Lommatzsch AP, et al. Endophthalmitis als schwere Komplikation der intravitrealen Medikamentengabe. Klin Monbl Augenheilkd. 2013;230(11):1130-4.
- Li XT, Qin Y, Zhao JY, Zhang JS. Acute lens opacity induced by different kinds of anesthetic drugs in mice. Int J Ophthalmol. 2019;12(6):904-8.
- Tkatchenko TV, Tkatchenko AV. Ketamine-xylazine anesthesia causes hyperopic refractive shift in mice. J Neurosci Methods. 2010;193(1):67-71.
- Lin S-C, et al. The Function of Transforming Growth Factor 2 in Facilitating Inflammas ome Activation to Enhance the Development of Myopia via Complement Sys tem. Cells. 2025;14(16):1295.
- Wei CC, et al. Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression. EBioMedicine. 2018;28:274-86.
- Wei CC, et al. Corrigendum to "Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression" [EBioMedicine 28 (2018) 274-286]. EBioMedicine. 2019;41:717-8.
- Lin HJ, et al. Role of Chronic Inflammation in Myopia Progression: Clinical Evidence and Experimental Validation. EBioMedicine. 2016;10:269-81.
- Lin HJ, et al. Sclera-related gene polymorphisms in high myopia. Mol Vis. 2009;15:1655-63.
- Lin CF, et al. Harnessing Lactiplantibacillus plantarum EP21 and its membrane vesicles to inhibit myopia development. Gut Microbes. 2025;17(1):2534677.
- Chou Y-L, et al. Complement decay-accelerating factor inhibits inflammation-induced myopia development. Molecular Immunology. 2024;171:47-55.
- Ku H, et al. Myopia development in tree shrew is associated with chronic inflammatory reactions. Current Issues in Molecular Biology. 2022;44(9):4303-13.
- Chou Y-L, et al. Vitamin D3 Reshapes Gut Microbiota and Metabolite Profiles in a Rat Model of Inflammation-Induced Myopia. Biomolecules. 2026;16(7):939.
- Wallman J, Winawer J. Homeostasis of eye growth and the question of myopia. Neuron. 2004;43(4):447-68.
- Morgan IG, et al. IMI Risk Factors for Myopia. Investigative Ophthalmology & Visual Science. 2021;62(5).
- Wildsoet C, et al. IMI-interventions for controlling myopia onset and progression report. Investigative Ophthalmology and Visual Science. 2019;60(3):M106-M31.
- Rada JAS, Shelton S, Norton TT. The sclera and myopia. Experimental eye research. 2006;82(2):185-200.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً