يوضح هذا البروتوكول ترسيب مكونات جدار الخلية من اللجنين والبكتين في مقاطع عرضية لسيقان البرسيم الحجازي (Medicago sativa L.). والهدف من ذلك هو تحديد أنسجة معينة في الساق يمكن استهدافها لتطوير سلالات جديدة من البرسيم الحجازي تتميز بخصائص مرغوبة فيما يتعلق بقابلية هضم الساق.
مقالة منهجية
تحضين In vitro مع سائل الكرش والصبغ النسيجي لمكونات مختارة من الجدار الخلوي في سيقان البرسيم الحجازي (Medicago sativa L.)
في هذه المقالة
ملخص
الملخص
يحد تراكم مكونات الجدار الخلوي مع نمو النباتات من القيمة الغذائية للأعلاف المخصصة للمجترات. وبوجه خاص، يعيق ترسيب اللجنين في أنسجة النبات تكسير كربوهيدرات الجدار الخلوي، مثل السليلوز والهيميسليلوز، مما يقلل من كمية الطاقة المتاحة من العلف. ومع ذلك، فإن مكون البكتين في الجدار الخلوي، والذي يتميز بقابلية عالية للهضم، متاح بسهولة للتحلل. وقد توفر المعلومات المتعلقة بترسيب اللجنين والبكتين في أنواع مختلفة من خلايا الساق رؤى ميكانيكية حول العوامل الكامنة وراء التباين في قابلية هضم الساق بين سلالات البرسيم الحجازي. تحاكي عملية الحضانة In vitro للمقاطع العرضية للساق في سائل الكرش العمليات التي تمر بها أنسجة الساق داخل الكرش. وتتيح هذه الطريقة، المقترنة بالتلوين النسيجي والمجهري، تصور التغيرات في تحلل الأنسجة بمرور الوقت وتحديد موقع اللجنين والبكتين في الساق. يتفاعل صبغ ويسنر (Wiesner stain) مع وحدات ألدهيد الغواياسيل (G) في اللجنين، ويلونها باللون الفوشيا. وبالمثل، يتفاعل الروديوم الأحمر مع مجموعات الكربوكسيل في البكتين، مما يلون البكتين في الساق بدرجات تتراوح من الوردي إلى البرتقالي والبني. يصف هذا البروتوكول عملية هضم المقاطع العرضية لساق البرسيم الحجازي بعد تعريضها لميكروبات الكرش، يلي ذلك التلوين لتصوير أنماط اللجنين والبكتين في الجدران الخلوية. ويمكن استخدام هذه الطريقة لتحديد أنسجة الساق التي يتواجد أو يغيب فيها اللجنين والبكتين، مما يسهل المقارنات بين سلالات البرسيم الحجازي.
المقدمة
يحيط جدار خلوي بكل خلية نباتية. وتعد السليلوز، والهيميسليلوز، واللجنين، والبكتين من مكونات الجدار الخلوي وتساهم في تكوين الألياف النباتية، وهي جزء ضروري من نظام غذاء المجترات. وبينما تعتبر البكتينات عديدات تسكر قابلة للهضم (ذائبة) للغاية1، فإن اللجنين بوليمر غير قابل للهضم يحد من تحلل الألياف2. وبناءً على ذلك، يقلل اللجنين من قابلية النبات للهضم، مما يؤدي في النهاية إلى خفض الطاقة المتاحة للمجترات من العلف. ومع ذلك، يدعم اللجنين وظائف فسيولوجية نباتية هامة، مثل توصيل المياه في جميع أنحاء النبات عن طريق تعزيز عناصر القصيبات3. وقد أظهرت الدراسات السابقة أن التغيرات في ألياف الساق التي تقلل من اللجنين أو تزيد من البكتين يمكن أن تعزز قابلية الساق للهضم والقيمة الغذائية للعلف4. لذا، يركز هذا البروتوكول على هذين المكونين من الجدار الخلوي. إن تركيزات اللجنين والبكتين الإجمالية في الجدار الخلوي للساق لا توفر معلومات كافية لشرح الآليات الكامنة وراء قابلية ألياف الساق للهضم5. ويمكن أن يوفر التحضين In vitro باستخدام سائل الكرش والصبغ النسيجي رؤى على المستوى الخلوي من خلال تصور الاختلافات في مكونات الجدار الخلوي بين النباتات ذات القابلية المتفاوتة لهضم ألياف الساق4,6. في البروتوكول الحالي، تُستخدم برسيم alfalfa (Medicago sativa L.)، وهو بقولي علفي معمر شائع، كنوع نموذجي لتوضيح أنماط اللجنين والبكتين في أنسجة الساق، والتي تحتوي على لجنين أكثر وبكتين أقل مقارنة بالأوراق.
In vitro التحضين باستخدام سائل الكرش يحاكي عملية هضم العلف في معدة المجترات، مما يسمح بمراقبة تأثيرات تشريح العلف على القابلية للهضم. ومن خلال تهيئة ظروف في أنبوب اختبار مشابهة لتلك الموجودة في الكرش، يمكن إزالة المقاطع العرضية للساق الملتصقة بشرائح زجاجية في نقاط زمنية مختلفة لتقييم درجة تحلل الأنسجة بعد التعرض لسائل الكرش6. وتوفر هذه الطريقة نهجًا بسيطًا وسريعًا وغير مكلف نسبيًا لتصور البنى التشريحية لسيقان البرسيم الحجازي7 وفحص كيفية تغير أنواع الخلايا التي تحتوي على مكونات مختلفة من جدار الخلية أثناء هضم الساق.
يتيح التلوين النسيجي للمقاطع العرضية للساق رؤية مكونات الجدار الخلوي. يتحد الفلوروغلوسينول وحمض الهيدروكلوريك (HCl) لتكوين صبغة ويزنر (Wiesner stain)، والتي تبرز أنسجة الساق التي تحتوي على وحدات لغنين غنية بالغواياكيل8 من خلال التفاعل مع مونومرات ألدهيد G C6C3 (coniferaldehyde)9. يتكون اللغنين من عدة وحدات فرعية مونومرية؛ ومع ذلك، يشير مصطلح "اللغنين" في جميع أنحاء هذا المقال حصرياً إلى مونومر وحدة-G، لأنه المونومر الذي يتفاعل مع صبغة ويزنر10 وبالتالي يتم تصويره باستخدام هذا البروتوكول. هناك بعض الأنسجة، مثل أوعية الخشب، تكون ملجننة دائماً6. وبخلاف ذلك، يبدأ ترسيب اللغنين في أنسجة ساق البرسيم الحجازي بمجرد بدء النمو الثانوي (الكمبيومي) ويتزامن ذلك مع توقف استطالة السلاميات في الساق6. يرتبط اللون الأحمر الروسي (Ruthenium red) بالمواد البكتينية، التي تحتوي على مجموعات كربوكسيل تكون أحياناً مأسترة وتشترك في بعض السلاسل الجانبية11. تتفاعل مجموعات الكربوكسيل في البكتينات الموجودة في الصفيحة المتوسطة وجدران الخلايا الأولية مع اللون الأحمر الروسي11. يشارك البكتين في استطالة الخلايا وبالتالي يتواجد في الخلايا أثناء النمو الأولي. ويشير مصطلح "البكتين" في جميع أنحاء المخطوطة بشكل عام إلى مجموعة البكتينات التي قد تكون موجودة. إن الجمع بين التلوين النسيجي والتحضين المخبري in vitro لكرش الحيوان يسهل مراقبة موقع مكونات الجدار الخلوي في الساق ويوضح كيف تتغير أنواع الخلايا المختلفة أثناء الهضم في الكرش. وفي النهاية، يمكن استخدام هذا البروتوكول لتحديد خلايا الساق التي تحتوي على اللغنين والبكتين وتوصيف الأنماط عبر سلالات البرسيم الحجازي وأوقات التحضين المختلفة.
البروتوكول
أُجري هذا البحث وفقاً للإرشادات المؤسسية الخاصة بالحيوانات الخاضعة للتجارب (IACUC 2301-40689B).
1. تمييز أنابيب العينات
- تجهيز وتوسيم أنابيب العينات لعمليات الحضن والتخزين والتصبيغ
- قم بالتوسيم المسبق لخمس مجموعات منفصلة من أنابيب الطرد المركزي المخروطية ذات الغطاء اللولبي والقابلة للتخلص منها بسعة 50 mL لكل عينة. أضف معرف العينة ووقت الحضن إلى كل أنبوب للاستخدامات الموضحة أدناه.
- قم بتوسيم أنابيب الحفظ ما قبل الحضن وأضف 35 mL من الماء فائق النقاء.
- قم بتوسيم أنابيب الحضن لاستخدامها في القسمين 3 و4. نظم الأنابيب في حاملات منفصلة حسب وقت الحضن (0، 4، 8، 24، 48، أو 96 h).
ملاحظة: استخدم قلم تحديد دائم من الدرجة الصناعية لمنع زوال الملصقات أثناء وضعها في الحمام المائي. - قم بتوسيم أنابيب التخزين ما بعد الحضن وأضف 35 mL من خليط بنسبة 50:50 من الجلسرين بتركيز 100% والماء فائق النقاء. استخدم هذه الأنابيب لتخزين المقاطع العرضية المهضومة على الشرائح حتى عملية التصبيغ.
- قم بتوسيم أنابيب ما قبل التصبيغ وأضف 35 mL من خليط بنسبة 50:50 من الإيثانول بتركيز 200-proof والماء فائق النقاء. استخدم هذه الأنابيب لاستخلاص الجلسرين من المقاطع العرضية قبل التصبيغ.
- قم بتوسيم أنابيب الترطيب وأضف 35 mL من الماء فائق النقاء.
2. تقطيع ساق النبات بالعرض وتثبيتها على الشرائح
- باستخدام الملقط، اختر قطعة واحدة من الساق في كل مرة من سيقان العينة واستأصل مركز القطعة.
ملاحظة: استخدم أربع سيقان لكل عينة كمكررات تقنية لكل مكرر بيولوجي. اختر السيقان الأربع عشوائياً من بين جميع السيقان الممكنة لكل عينة. استخدم مجموعة إضافية من السيقان القياسية كعينة ضابطة عبر جميع دورات التحضين. - اقطع مستطيلين من رغوة البوليسترين المبثوق الصلبة العازلة، بطول 2.5 cm تقريباً وسمك 0.6 cm. اقطع وتداً صغيراً على طول كل قطعة بحيث تستقر السلمية بين قطعتي الرغوة بإحكام.
- ثبّت "شطيرة" الساق على منصة الميكروتوم المنزلق القادر على إنتاج مقاطع بسمك 100 μm. باستخدام فرشاة رسم دقيقة السن، ضع قطرة من الماء على الساق وشفرة الميكروتوم لتسهيل عملية القطع النظيف.
- اقطع مقاطع عرضية من الساق بسمك 100 μm. استخدم فرشاة الرسم لنقل كل مقطع عرضي إلى طبق بتري مُصنف مسبقاً يحتوي على ماء فائق النقاء للتخزين المؤقت، وأزل أي بقايا من الرغوة من الطبق.
ملاحظة: استبدل شفرة الميكروتوم إذا تمزقت الرغوة، حيث قد يشير التمزق إلى أن الشفرة أصبحت ثلمة. - قم بتصنيف شريحتين زجاجيتين قياسيتين 25 mm × 75 mm يدوياً لكل عينة عند كل وقت تحضين (صبغتان × 6 نقاط زمنية = 12 شريحة لكل عينة لكل من المكررات البيولوجية). قم بتضمين معرف العينة، ووقت التحضين، ونوع الصبغة على كل ملصق.
- اقطع قطعة بطول 2.5 cm وعرض 2 mm من شريط لاصق مزدوج الوجه. ضع الجانب القصير من الشريط على بُعد 0.5 cm من أسفل الشريحة، بحيث يكون الجانب اللاصق متجهاً للأسفل، واضغط بقوة على جانب الورق الشمعي للشريط أثناء ارتداء القفازات لضمان الالتصاق.
ملاحظة: نفذ هذه الخطوة على سطح مستوٍ لتجنب كسر الشرائح الزجاجية. - استخدم مجهر تشريحي لتوجيه جميع المقاطع العرضية في الاتجاه نفسه. انزع الورق الشمعي من الشريط اللاصق مزدوج الوجه، ومع الحفاظ على توجيه المقاطع العرضية، انقلها إلى الشريط الموجود على الشريحة الزجاجية المصنفة مسبقاً باستخدام فرشاة رسم مبللة دقيقة السن. حافظ على رطوبة المقاطع العرضية قليلاً.
- ضع الورق الشمعي فوق المقاطع العرضية ومرر فرشاة الرسم فوقه بخفة لتثبيت المقاطع العرضية بإحكام على الشريط اللاصق مزدوج الوجه. انزع الورق الشمعي وضع الشريحة المثبتة التي تحتوي على أربعة مقاطع عرضية في أنبوب الحفظ المصنف مسبقاً الموصوف في الخطوة 1.1.2، مع التأكد من أن الماء فائق النقاء يغطي المقاطع العرضية المثبتة.
- للتصبيغ باستخدام كل من صبغة ruthenium red وصبغة Wiesner، ضع شريحتين ظهراً لظهر في كل أنبوب حفظ بحيث يكون الشريط اللاصق مزدوج الوجه متجهاً للخارج.
ملاحظة: بعد تثبيت جميع الشرائح ووضعها في أنابيب تحتوي على ماء فائق النقاء، خزن الشرائح طوال الليل في درجة حرارة الغرفة إذا لزم الأمر.
3. التحضير للتحضين in vitro للمقاطع العرضية للساق
- استخدم أنابيب الطرد المركزي ذات السعة 50 mL ذات الغطاء اللولبي والمعدة للتحضين (انظر 1.1.3). قم بتجميع كافة أنابيب العينات الخاصة بكل فترة تحضين على حامل بلاستيكي واحد.
- استخدم ميزانًا تحليليًا بدقة أربعة منازل عشرية لوزن 0.2 g من مادة قياسية لساق ذرة مطحونة بحجم 1 mm على ورق وزن، وانقل المادة بعناية إلى كل أنبوب تحضين باستثناء أنابيب 0 h، والتي تعمل كمجموعة ضابطة غير محُضنة. أغلق الأنابيب بالأغطية واتركها جانبًا حتى وقت الاستخدام.
ملاحظة: توفر المادة القياسية لساق الذرة الطاقة اللازمة لاستدامة ميكروبات الكرش أثناء التحضين لأن الكتلة الحيوية للمقاطع العرضية للساق غير كافية للحفاظ على النشاط الميكروبي. - املأ حمامًا مائيًا دوارًا بكمية كافية من الماء وقم بموازنته عند 39 °C قبل بدء التحضين. اضبط عمق الماء ليغطي علامة 35 mL في أنابيب 50 mL، واستخدم جهاز تهوية إذا لزم الأمر للحفاظ على تدوير منتظم للمياه ودرجة حرارة ثابتة.
- تحضير محلول منظم McDougall لمحلول التلقيح
- قم بتحضير محلول منظم McDougall في مدة لا تزيد عن يومين قبل بدء عمليات التحضين.
ملاحظة: اخلط محلول منظم McDougall مع سائل الكرش بنسبة 4:1 لتحضير محلول التلقيح. اضبط حجم المحلول المنظم ليتناسب مع عدد العينات، وحضّر كمية كافية من محلول التلقيح لتوفير 30 mL لكل أنبوب. - قِس 1,600 mL من الماء فائق النقاء. انقل 1 L إلى دورق إرلنماير مسطح سعة 3 L واحتفظ بـ 600 mL لنقل وشطف الكواشف.
- ضع قضيب تحريك مغناطيسي في دورق إرلنماير وضع الدورق على لوحة تحريك.
- ضع قمعًا بلاستيكيًا في دورق إرلنماير. أضف 15.7 g من بيكربونات الصوديوم (NaHCO₃)، و 5.9 g من فوسفات الصوديوم ثنائية القاعدة اللامائية (Na₂HPO₄)، و 0.91 g من كلوريد البوتاسيوم (KCl)، و 0.75 g من كلوريد الصوديوم (NaCl)، و 0.19 g من كبريتات المغنيسيوم سباعية الهيدرات (MgSO₄·7H₂O)، و 0.06 g من كلوريد الكالسيوم ثنائي الهيدرات (CaCl₂)، مع إضافة كاشف واحد في كل مرة والسماح لكل كاشف بالذوبان قبل إضافة التالي. استخدم أجزاءً من الـ 600 mL من الماء فائق النقاء المحفوظ لشطف القمع بعد كل إضافة.
- بعد إضافة كلوريد الكالسيوم ثنائي الهيدرات، أدخل ناشر CO₂ لتسهيل الذوبان وقم بتمرير الغاز في المحلول. بمجرد أن يصبح المحلول رائقًا، استمر في تمرير الغاز لمدة إضافية تتراوح بين 10–15 min.
- أغلق الدورق بإحكام وثبّت السدادة بشريط لاصق لأن تسخين المحلول المنظم قد يؤدي إلى زيادة الضغط داخل الوعاء.
- خزن المحلول عند 20 °C لمدة تصل إلى يومين. ضع المحلول في حمام مائي عند 39 °C في اليوم السابق للاستخدام، أو ضعه مباشرة في الحمام المائي عند 39 °C إذا كان سيُستخدم في اليوم التالي.
- قم بتحضير محلول منظم McDougall في مدة لا تزيد عن يومين قبل بدء عمليات التحضين.
4. تحضين مقاطع عرضية من الساق In vitro
- في يوم التحضين، ضع 47 مل من الماء و4 مل من هيدروكسيد الصوديوم (NaOH) بتركيز 1 عياري في دورق سعة 100 مل داخل خزانة استخلاص الغازات، ثم أضف 0.625 جم من السيستئين-HCl. وفي دورق ثانٍ سعة 100 مل، أضف 0.625 جم من كبريتيد الصوديوم إلى 47 مل من الماء، واحتفظ بالمحلولين منفصلين حتى يتم تحضير محلول التلقيح.
- املأ ترمساً عازلاً بالماء الساخن لإنشاء بيئة دافئة لنقل ميكروبات الكرش من البقرة إلى المختبر. وأحضر دلواً سعة خمسة جالونات لنقل الماء الساخن من الترمس.
- انتقل إلى الحظيرة لجمع سائل الكرش من البقرة ذات القنية المخصصة للتجربة من قبل إدارة الحظيرة.
ملاحظة: اجمع سائل الكرش في الوقت نفسه تقريباً من اليوم ومن البقرة نفسها طوال التجربة لتقليل التباين. نسّق مع إدارة الحظيرة لتقديم إشعار مسبق بموعد تواجدك في الحظيرة لجمع سائل الكرش. - تحديد البقرة التجريبية وارتداء معدات الوقاية الشخصية المناسبة، بما في ذلك معطف المختبر، وواقي العينين، وأغطية الأحذية، وقفازات تصل إلى الكتف.
ملاحظة: تقتصر الإجراءات الواردة في الخطوات 4.4-4.8 على الموظفين المصرح لهم بموجب بروتوكول لجنة رعاية واستخدام الحيوانات المؤسسية (IACUC) المعمول به. - انقل الماء الدافئ من الترمس إلى الدلو سعة خمسة جالونات. جهز طبقتين من الشاش درجة 50 (قماش الجبن) لترشيح مواد الكرش.
- جمع سائل الكرش من البقرة ذات القنية
- افتح الكانيولا (الأنبوب) بعناية وضع السدادة في الدلو سعة خمسة جالونات الذي يحتوي على ماء دافئ لتجنب تلوث السدادة. وباستخدام يد ترتدي قفازًا، قم بإزالة كمية كافية من مواد الكرش للوصول إلى الواجهة الفاصلة بين المواد الصلبة والسائلة في الكرش.
- بمجرد الوصول إلى الواجهة الصلبة-السائلة، اجمع عدة حفنات من المادة واضغطها عبر طبقتين من الشاش من درجة 50، بمساحة 45 سم مربع تقريباً لكل منهما، داخل ترمس ذي غطاء لولبي مسخن مسبقاً. تخلص من المادة المستهلكة بعد عصر سائل الكرش عبر الشاش.
- كرر الخطوة 4.6.2 حتى يتم الحصول على 1 لتر من سائل الكرش في الترمس لكل مجموعة مكونة من 60 أنبوب تلقيح، مع ضبط الحجم حسب الحاجة بناءً على عدد العينات المراد حضنها.
ملاحظة: هناك قيود محددة على كمية سائل الكرش التي يمكن استخراجها من الأبقار ذات القنيات في أسبوع معين. يرجى التواصل مع مدير الحظيرة للتأكد من أن كمية سائل الكرش المسحوبة لا تتجاوز الحد المسموح به للبقرة.
- عند جمع كمية كافية من سائل الكرش، أغلق الوعاء الحراري (thermos) بإحكام للحفاظ على درجة حرارته. أعد تركيب الكانيولا، واستخدم الماء الدافئ الموجود في الدلو سعة خمسة غالونات للتنظيف.
- تخلص من أغطية الأحذية والقفازات والشاش المتسخة في وعاء التخلص المناسب عند مغادرة الحظيرة. عُد إلى المختبر في أسرع وقت ممكن للحفاظ على درجة حرارة سائل الكرش والظروف اللاهوائية.
- عند العودة إلى المختبر، ادمج محلولي العامل المختزل (انظر 4.1) داخل خزانة استخلاص الغازات، وامزجهما لتحضير محلول الاختزال.
- ضع دورقاً زجاجياً بسعة 2 لتر على الأقل يحتوي على قضيب تحريك مغناطيسي كبير فوق لوح تحريك ساخن مضبوط على <30 °C، ووضع CO₂ ناشر فوق السائل. أضف 1,600 مل من محلول مكدوغال المنظم (McDougall’s buffer) وحرك ببطء دون السماح لثاني أكسيد الكربون (CO2)₂ الموزّع لملامسة السائل.
ملاحظة: استخدم كأساً من البولي بروبيلين إذا رغبت في ذلك عند درجة الحرارة المنخفضة هذه. استخدم CO₂ لإزاحة O₂ وتساعد في الحفاظ على الظروف اللاهوائية. - قم بتبطين قمع كبير بطبقتين من شاش الجبن عيار 50، وضعه فوق مخبار مدرج سعة 2 لتر. قم بترشيح 400 مل من سائل الكرش وأضفه إلى محلول McDougall المنظم (انظر 3.4.7) لتحضير محلول التلقيح.
- أضف 80 مل من محلول الاختزال (راجع 4.9) إلى محلول التلقيح وامزجهما ببطء. حافظ على الـ CO₂ منع الناشر من ملامسة السائل.
- داخل خزانة استخلاص الأبخرة، قم بإزالة الأغطية من أنابيب الحضانة ونظمها في رفوف منفصلة حسب زمن الحضانة. ثم قم بإزالة أغطية أنابيب الاحتفاظ في مرحلة ما قبل الحضانة تمهيداً لنقل الشرائح (راجع 1.1.2).
- اختر أنبوب احتجاز واحدًا من أنابيب ما قبل الحضانة بشكل عشوائي في كل مرة، واستخدم الملاقط لنقل الشرائح الزجاجية المثبتة إلى أنبوب الحضانة المقابل (انظر 1.1.3). ضع كل أنبوب حضانة يحتوي على الشرائح المثبتة في حامل عينات صغير، وضع أنبوب احتجاز ما قبل الحضانة جانبًا.
ملاحظة: استعن بشخصين لتنفيذ الخطوتين 4.14-4.15. وعند الإمكان، قلل من تبريد خليط سائل الكرش والمحلول المنظم. - اسحب 30 ملل من محلول التلقيح باستخدام حقنة سعة 60 ملل مزودة بإبرة كبيرة القطر وغير مدببة. صب المحلول ببطء على جدار أنبوب الحضن، ثم قم بتطهير الأنبوب باستخدام غاز CO2.₂ لمدة 20 ثانية تقريباً، غطِّ الأنبوب، ثم أعِده إلى الحامل.
- ضع الرفوف التي تحتوي على الأنابيب الملقحة في 39 °C حمام مائي. قم بتدوير الأنابيب بلطف مرة واحدة يومياً على الأقل، وغير مواضع الحامل يومياً لتقليل التسخين غير المتكافئ.
ملاحظة: يشير تكون فقاعات غازية في الأنابيب إلى حدوث تخمر نشط. - في نهاية كل فترة تحضين، أخرج الحامل المقابل من الحمام المائي. افتح الأنابيب واحدًا تلو الآخر، وأخرج كل شريحة، ثم اشطف المواد الصلبة ومحلول التلقيح المتبقي برفق باستخدام ماء عالي النقاوة.
- ضع الشرائح المغسولة في أنابيب التخزين لما بعد الحضن التي تحتوي على خليط الجلسرول والماء الموضح في الخطوة 1.1.4.
5. صبغ المقطع العرضي للكشف عن اللجنين
- إذا كانت الشرائح قد خُزنت في خليط من الجلسرول والماء بنسبة 50:50، فانقل كلتا الشريحتين اللتين تحتويان على المقاطع العرضية المثبتة إلى أنابيب شطف ما قبل التلوين التي تحتوي على محلول الإيثانول والماء فائق النقاء (انظر 1.1.5). تُحفظ الأنابيب طوال الليل في الثلاجة لإزالة الجلسرول قبل التلوين.
- حضّر محلول فلوروغلوسينول (PG) بتركيز 3% عن طريق إذابة 0.3 g من PG في 10 mL من الإيثانول المطلق في دورق إرلنماير سعة 25 mL ملفوف بورق ألومنيوم لحماية الكاشف الحساس للضوء من الضوء. أغلق الدورق بإحكام وضع عليه ملصقاً يتضمن اسم المحلول، وتاريخ التحضير، واسم المُحضّر، ثم خزنه في درجة حرارة 20 °C.
- أخرج الشرائح من الأنابيب المبردة وانقلها مؤقتاً إلى أنابيب الترطيب الموصوفة في الخطوة 1.1.6، والتي تحتوي على ماء فائق النقاء بنسبة 100%.
ملاحظة: حافظ على ترطيب المقاطع العرضية أثناء التعامل معها لتقليل الأكسدة، والتي قد تتلف المقاطع وتؤثر على التصوير اللاحق. - حضّر صبغة فيسنر (Wiesner) داخل خزانة استنشاق الغازات باستخدام ماصة عن طريق خلط 50 μL من PG بتركيز 3% في الإيثانول (انظر 5.2) مع 25 μL من حمض الهيدروكلوريك (HCl) في بيكر سعة 50 mL.
ملاحظة: اضبط الكميات لتتناسب مع عدد الشرائح مع الحفاظ على نسبة 2:1 بين PG و HCl.
تحذير: تعامل مع حمض الهيدروكلوريك داخل خزانة استنشاق الغازات لأنه مسبب للتآكل في المعادن، ويسبب حروقاً جلدية شديدة وتلفاً للعين، وقد يسبب تهيجاً للجهاز التنفسي. تجنب استنشاق الأبخرة أو الرذاذ، وارتدِ القفازات الواقية والملابس وحماية العين والوجه المناسبة، واغسل الجلد المعرض للمادة جيداً بعد التعامل معها. - أخرج شريحة واحدة من الأنبوب وجفف الزجاج المحيط بالشريط اللاصق مزدوج الوجه بلطف باستخدام منديل منخفض الوبر لمنع تدفق الصبغة بعيداً عن الشريط. ضع الشريحة على صينية بلاستيكية صغيرة واستخدم ماصة لوضع عدة قطرات من صبغة فيسنر فوق المقاطع العرضية.
- اضبط المؤقت على 12 min وغطِّ الشرائح بورق ألومنيوم لحمايتها من الضوء. افحص المقاطع العرضية أثناء التلوين وأعد وضع الصبغة حسب الضرورة لمنع الجفاف.
ملاحظة: امنع جفاف المقاطع العرضية لأن الأكسدة يمكن أن تتلف الأنسجة وتؤثر على التصوير اللاحق. - بعد مرور 12 min، أزل صبغة فيسنر الزائدة بلطف باستخدام منديل منخفض الوبر. اغسل النسيج قبل التثبيت لتقليل تعرض عدسة الشيئية للمجهر لأبخرة HCl المسببة للتآكل.
- ضع 1–2 قطرة من خليط الجلسرول والماء فائق النقاء بنسبة 50% فوق كل مقطع عرضي وغطِّه بغطاء شريحة مقاس 24 mm × 30 mm (سمك No. 1.5). انتقل فوراً إلى التحليل المجهري والتصوير.
ملاحظة: التقط الصور خلال 6–8 h لأن تلوين فيسنر حساس للوقت وقد يتحول إلى اللون الأصفر وينتشر خارج المقطع العرضي بمرور الوقت.
6. صبغ المقطع العرضي للبكتين
- اتبع الخطوة 5.1 لإزالة خليط الجلسرول والماء فائق النقاء من الشرائح المخزنة قبل البدء في عملية الصبغ.
- حضّر محلول روتينيوم ريد بتركيز 0.02% عن طريق إذابة 0.02 g من الروتينيوم ريد في 100 mL من الماء فائق النقاء داخل دورق إرلنماير سعة 125 mL ملفوف برقائق الألومنيوم لحماية الكاشف الحساس للضوء من الإضاءة. أغلق الدورق بإحكام وضع عليه ملصقاً يتضمن اسم المحلول وتاريخ التحضير واسم المُحضّر، ثم خزنه في درجة حرارة 20 °C.
- أخرج الشرائح من أنابيب الإيثانول والماء فائق النقاء المبردة، وانقل الشرائح التي تحمل الملصقات الصحيحة وتحتوي على المقاطع المثبتة إلى أنابيب تحتوي على ماء فائق النقاء بتركيز 100% (انظر 1.1.6) للحفظ المؤقت.
ملاحظة: اتبع احتياطات الترطيب المذكورة في الخطوة 5.3. - انقل شريحة واحدة من الماء فائق النقاء باستخدام ملقط، وجفف الماء الموجود حول الشريط باستخدام منديل خالي من الوبر لمنع تدفق الصبغة على الزجاج. ضع الشريحة في صينية بلاستيكية صغيرة.
- ضع عدة قطرات من محلول روتينيوم ريد (انظر 6.2) لتغطية المقاطع العرضية بالتساوي. غطِّ الشرائح برقائق الألومنيوم لمدة 10 min لحمايتها من الضوء، ثم اشطف الصبغة برفق من الشريحة باستخدام الماء فائق النقاء لمدة 2 min.
- جفف الماء الزائد من الشريحة وضع 1–2 قطرة من خليط الجلسرول والماء فائق النقاء بتركيز 50% فوق كل مقطع عرضي. غطِّ المقاطع العرضية بغطاء شرائح قياس 24 mm × 30 mm (سُمك No. 1.5)، ثم انتقل إلى التحليل المجهري والتصوير.
ملاحظة: أجْرِ التحليل المجهري في نفس اليوم للحصول على أفضل النتائج.
7. التصوير بالمجال المضيء
- افحص المقاطع العرضية تحت إضاءة المجال المضيء باستخدام المجهر بتكبيرات 10× و20× و40×. راجع الجدول 1 لمعرفة معايير وإعدادات التقاط الصور.
النتائج
أتاح استخدام أنابيب الطرد المركزي لمحاكاة ظروف الكرش إجراء عملية هضم in vitro سريعة وغير مكلفة نسبيًا للمقاطع العرضية لسوق نبات Medicago sativa. وباستخدام الميكروتوم المنزلق، تم تحضير مقاطع عرضية من سوق M. sativa بسمك 100 μm (الشكل 1A). ثُم ثُبِّتت المقاطع العرضية للسوق على شرائح زجاجية باستخدام شريط لاصق مزدوج الوجه (الشكل 1B) وغُمرت في محلول تلقيح سائل الكرش لفترات حضانة تتراوح من 4 h إلى 96 h (الشكل 1C). ولأغراض الحضانة in vitro، استُخدمت أنابيب طرد مركزي بلاستيكية ذات غطاء سعة 50 mL كأوعية للحضانة، وأُضيف إليها 0.2 g من مادة ركيزة ساق الذرة المطحونة بحجم 1 mm للحفاظ على كائنات الكرش الدقيقة طوال فترة الحضانة. حُضنت الأنابيب في حمام مائي تم الحفاظ على درجة حرارته عند 39 °C (الشكل 1D). وتم التأكد بصريًا من حدوث تخمر نشط بواسطة كائنات الكرش الدقيقة من خلال تكون فقاعات غازية في محلول التلقيح. إن المواد المطلوبة لهذا البروتوكول متوفرة عادةً في مختبرات الكيمياء الرطبة. لم يمنع الشريط اللاصق مزدوج الوجه تحلل الأنسجة أثناء التعرض لسائل الكرش، ولكنه حافظ على أجزاء الساق المتبقية بعد الهضم، مما سمح بإجراء الصبغ والتصوير المجهري لاحقًا.
أتاحت المقاطع العرضية للساق التي لم تخضع للتحضين in vitro (0 h) رؤية المكونات الأولية لجدار الخلية عبر أنسجة الساق المختلفة. وقد حددت المقاطع العرضية المصبوغة بصبغة Wiesner الأنسجة التي تظهر تلوناً مرتبطاً باللجنين (Figure 2A–E)، بينما أبرزت المقاطع العرضية المصبوغة بأحمر الروديوم الأنسجة التي تظهر تلوناً مرتبطاً بالبكتين (Figure 3A–E). وفي المقاطع المصبوغة بصبغة Wiesner، أظهرت ألياف اللحاء الأولي الناضجة تلوناً بلون الفوشيا (Figure 2B–E). كما أظهرت أوعية الخشب والخشب بين الحزم تلوناً بلون الفوشيا أيضاً (Figure 2B–D). ولوحظ تلون أحمر الروديوم في البشرة، والقشرة الكولنكيمية، والنخاع الكلورنشيمي، واللحاء الثانوي (Figure 3B–E)، والنخاع (Figure 3B–D). كما صُبغت بعض ألياف الخشب بين الحزم واللحاء الأولي بأحمر الروديوم (Figure 3B–E). وتم تصوير المقاطع العرضية للساق بأكملها عن طريق دمج شبكة 5 × 5 من الصور التي تم التقاطها بتكبير 10× (Figure 2A و Figure 3A). كما تم التقاط صور إضافية لمنطقة واحدة من المقطع العرضي للساق بتكبيرات 10× (Figure 2B و Figure 3B)، و 20× (Figure 2C و Figure 3C)، و 40× فوق (Figure 2D و Figure 3D) وتحت (Figure 2E و Figure 3E) الكامبيوم الوعائي.
ظهرت الأنسجة المصبوغة بصبغة ويزنر (Wiesner) في المقاطع العرضية لساق نبات M. sativa عبر جميع فترات الحضن in vitro من 0 h إلى 96 h (الشكل 4A–F). وفي الساعة 0 h، كانت جميع الخلايا ذات حواف واضحة (الشكل 4A). وبعد 8 h، بدأت تظهر أدلة على تحلل الأنسجة من خلال عدم وضوح حواف الخلايا ذات الجدران الخلوية الرقيقة غير الملحنة (أي غير المصبوغة) (مثل الكولنشيمة) واختفاء بعض الخلايا (مثل اللحاء الثانوي). وبعد 24 h، أصبح الهيكل الحلزوني ثلاثي الأبعاد لأوعية الخشب أكثر وضوحاً مع تحلل الأنسجة المحيطة (الشكل 4D). وبعد مرور 24 h، تحللت الخلايا غير المصبوغة تدريجياً واختفت (الشكل 4D–F). ومع تحلل هذه الأنسجة، أدى فقدان الدعم التشريحي إلى انهيار البشرة غير المصبوغة جانبياً، مما أدى إلى ظهور شريط من الخلايا الرقيقة والشفافة عند 24 و 48 و 96 h (الشكل 4D–F).
أتاح الحضان In vitro للمقاطع العرضية لساق نبات M. sativa المتبوع بصبغة أحمر الراتينوم تصور الصبغة المرتبطة بالبكتين في أنسجة الساق بعد 0-96 ساعة من التعرض لسائل الكرش (الشكل 5A–F). عند 0 إلى 4 ساعات، تشير الحواف الواضحة حول جميع الخلايا إلى أنها كانت سليمة (الشكل 5A،B). ومع تقدم وقت الحضان إلى 8 ساعات، فقدت الأنسجة ذات الجدران الخلوية الرقيقة غير اللجنينية في القشرة، بما في ذلك الكولنكيما والكلورنكيما واللحاء الثانوي، سلامتها الهيكلية تدريجياً، مما أدى إلى طمس حواف الخلايا (الشكل 5C). وعند 24 و48 و96 ساعة، اختفى جزء كبير من النسيج القشري المحيط، بينما ظلت أجزاء من البشرة والخشب بين الحزم والنخاع والأنسجة الوعائية مرئية (الشكل 5D–F). وقد صاحب فقدان البنية التشريحية المحيطة انهيار جانبي لمنطقة البشرة. وبحلول الساعة 96، تبقى نسيج مصبوغ بأحمر الراتينوم أقل بكثير مما كان عليه في أوقات الحضان المبكرة (الشكل 5F). وبشكل عام، صاحب الفقد التدريجي لأنسجة الساق أثناء الحضان انخفاض في الخلايا التي أعطت صبغة إيجابية لأحمر الراتينوم. وكان تحلل واختفاء الخلايا الرقيقة غير اللجنينية والمرتبطة بالبكتين متوقعاً لأن البكتين يتحلل بسهولة بمرور الوقت.
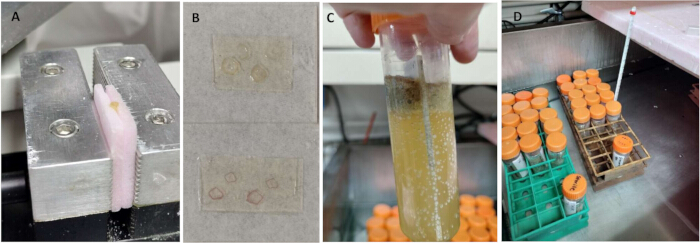
الشكل 1: حضن مقاطع عرضية لساق البرسيم الحجازي في المختبر.(A) تم تثبيت قطع من ساق البرسيم الحجازي بين قطعتين من عزل الرغوة الصلبة من البوليسترين المبثوق ووضعها على منصة ميكروتوم منزلقة لإجراء القطع العرضي. (B) تم تثبيت أربعة مقاطع عرضية، بسمك 100 μm لكل منها، على شريحة زجاجية باستخدام شريط لاصق مزدوج الوجه لغرض الحضن في المختبر والتصبيغ النسيجي. (C) وُضعت شريحتان زجاجيتان ظهراً لظهر، مع توجيه الشريط اللاصق مزدوج الوجه للخارج، في أنبوب سعة 50 mL يحتوي على 30 mL من محلول تلقيح منظم لسائل الكرش و0.2 g من سيقان الذرة المطحونة بحجم 1-mm. تم تطهير الأنبوب باستخدام CO₂ وإغلاقه بإحكام للحضن. وأشارت فقاعات الغاز على جانب الأنبوب إلى عملية تخمير نشطة بواسطة كائنات الكرش الدقيقة أثناء الحضن. (D) تم الحفاظ على الرفوف التي تحتوي على أنابيب الـ 50 mL في حمام مائي عند درجة حرارة 39 °C طوال فترة الحضن. غطى مستوى الماء محلول التلقيح ولكنه ظل أدنى من فتحات الأنابيب، مما منع دخول الماء إلى الأنابيب. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
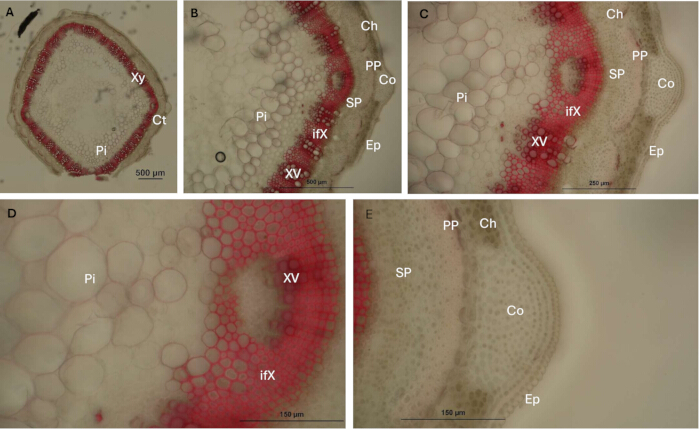
الشكل 2: يشير صبغ Wiesner لأنسجة ساق البرسيم الحجازي إلى توزيع مكونات الجدار الخلوي الملقنة. (A–E) تم استخدام مقاطع عرضية غير مهضومة لساق البرسيم الحجازي (زمن الحضن = 0 h) كمرجع أولي لتحديد أنسجة الساق التي تظهر صبغ Wiesner. تلونت أوعية الخشب (XV)، والخشب بين الحزم (ifX)، وألياف اللحاء الأولية الناضجة (PP) باللون الفوشيا. التكبيرات وأشرطة المقياس: (A) شبكة 5 × 5 من الصور المجمعة التي تم الحصول عليها بتكبير 10×، شريط المقياس = 500 μm؛ (B) 10×، شريط المقياس = 500 μm؛ (C) 20×، شريط المقياس = 250 μm؛ (D, E) 40×، أشرطة المقياس = 150 μm. الاختصارات: Xy = الخشب؛ Ct = القشرة؛ Pi = النخاع؛ Ep = البشرة؛ Co = النسيج الكولنشيمي؛ Ch = النسيج الكلورنشيمي؛ SP = اللحاء الثانوي؛ XV = أوعية الخشب؛ ifX = الخشب بين الحزم؛ PP = ألياف اللحاء الأولية الناضجة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
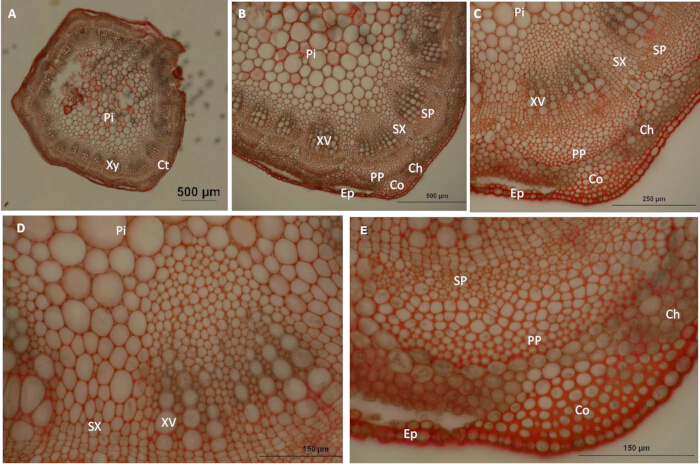
الشكل 3: يشير صبغ أحمر الروثينيوم لأنسجة ساق البرسيم إلى توزيع polysaccharides البكتينية في جدران الخلايا. (A–E) عملت المقاطع العرضية لساق البرسيم غير المهضومة (زمن الحضانة = 0 h) كمرجع أولي لتحديد أنسجة الساق التي تظهر صبغ أحمر الروثينيوم. أظهرت البشرة (Ep)، والكولنشيمة (Co)، والكلورنشيمة (Ch)، واللحاء الثانوي (SP)، والنخاع (Pi) صبغاً أحمر. كما أظهر الخشب الثانوي (SX) واللحاء الأولي الناضج (PP) صبغاً، بينما ظلت أوعية الخشب (XV) غير مصبوغة نسبياً. التكبيرات وأشرطة المقياس: (A) شبكة 5 × 5 من الصور المجمعة التي تم الحصول عليها بتكبير 10×، شريط المقياس = 500 μm؛ (B) 10×، شريط المقياس = 500 μm؛ (C) 20×، شريط المقياس = 250 μm؛ (D, E) 40×، أشرطة المقياس = 150 μm. الاختصارات: Xy = خشب؛ Ct = قشرة؛ Pi = نخاع؛ Ep = بشرة؛ Co = كولنشيمة؛ Ch = كلورنشيمة؛ SP = لحاء ثانوي؛ XV = أوعية خشب؛ SX = خشب ثانوي؛ PP = لحاء أولي ناضج. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
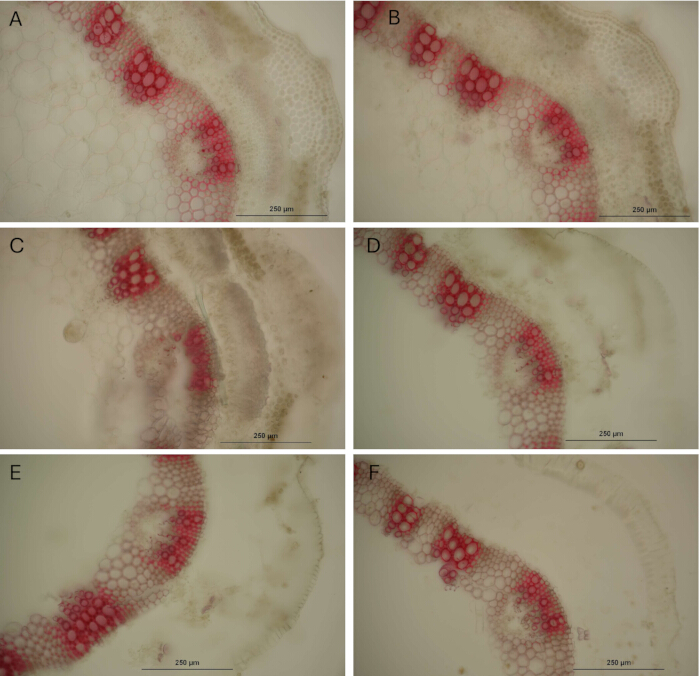
الشكل 4: التغيرات في أنسجة ساق البرسيم الحجازي بعد الحضن in vitro وتصبيغ Wiesner. خضعت مقاطع عرضية من سيقان البرسيم الحجازي من نفس السلميات للحضن in vitro مع سائل الكرش لمدة (A) 0 h، و (B) 4 h، و (C) 8 h، و (D) 24 h، و (E) 48 h، و (F) 96 h. احتفظت أوعية الخشب (XV)، والخشب بين الحزم (ifX)، وألياف اللحاء الأولية الناضجة (PP) بتصبيغ Wiesner طوال فترات الحضن. لوحظ تصبيغ باهت لـ ifX في أنسجة الساق غير الناضجة. ومع زيادة وقت الحضن، فقدت الأنسجة المحيطة سلامتها الهيكلية تدريجياً، مما جعل الهياكل الوعائية المصبوغة المتبقية تظهر بشكل أكثر وضوحاً. أشرطة المقياس = 250 μm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
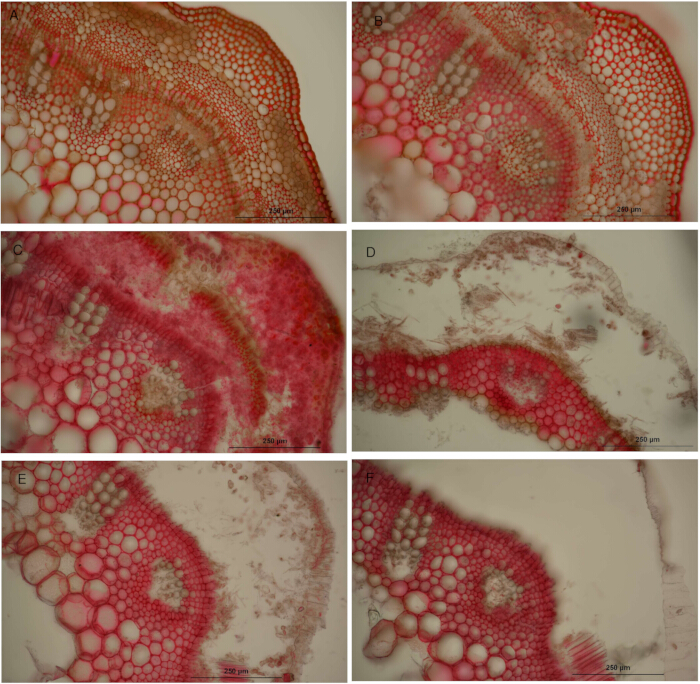
الشكل 5: التغيرات في أنسجة ساق البرسيم الحجازي بعد الحضانة in vitro والصبغ بأحمر الروبينيوم. خضعت مقاطع عرضية لساق البرسيم الحجازي من نفس السلاميات لحضانة in vitro مع سائل الكرش لمدة (A) 0 h، و(B) 4 h، و(C) 8 h، و(D) 24 h، و(E) 48 h، و(F) 96 h. لوحظ صبغ أحمر الروبينيوم في أنسجة متعددة للساق، بينما ظلت أوعية الخشب (XV) غير مصبوغة نسبياً. ومع زيادة وقت الحضانة، لوحظ فقدان تدريجي لبنية الأنسجة وصبغ أحمر الروبينيوم. وظلت أجزاء من أوعية الخشب، والخشب بين الحزم (ifX)، والمنطقة البشرية (Ep) مرئية في أوقات الحضانة المتأخرة. مقاييس الرسم = 250 μm. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
| المعلمة | الإعداد |
| سريع (التركيز) | 2000 × 1328 |
| الجودة (الالتقاط) | 2000 × 1328 |
| وضع الألوان | RGB Color |
| عمق البت | 8-bit per channel |
| عمق اللون الفعال | 24-bit RGB (8-bit R + 8-bit G + 8-bit B) |
| الكسب (Gain) | 2 |
| زمن التعريض عند تكبير 10x (ms) | 30 |
| زمن التعريض عند تكبير 20x (ms) | 50 |
| زمن التعريض عند تكبير 150x (ms) | 150 |
الجدول 1: إعدادات المجهر والكاميرا للتصوير. إعدادات المجهر والكاميرا واكتساب الصور المستخدمة للتصوير بالمجال المضيء باستخدام مجهر رأسي مجهز بكاميرا رقمية ملونة وبرنامج تصوير.
المناقشة
تألفت مادة البرسيم الحجازي المستخدمة في الدراسة الحالية من مستنبتات من خمسة سلالات من البرسيم الحجازي. تم اختيار سلالتين تجريبيتين بعد دورتين من الانتخاب التباعدي لقابلية هضم الألياف المنظفة المتعادلة في المختبر (in vitro neutral detergent fiber digestibility (IVNDFD)) من نباتات أم ذات قيم منخفضة لـ 16 h IVNDFD ومنخفضة لـ 96 h IVNDFD، أو قيم مرتفعة لـ 16 h IVNDFD ومرتفعة لـ 96 h IVNDFD12. كما تضمنت الدراسة ثلاث سلالات تجارية ذات خلفيات وراثية غير معروفة، واختيرت النباتات الأم بناءً على تحليل مطيافية الأشعة تحت الحمراء القريبة لتحديد الأفراد ذات (أ) أعلى نسبة لغنين، و(ب) أقل نسبة لغنين، و(ج) أقل نسبة للألياف المنظفة المتعادلة والألياف المنظفة الحمضية. نُقلت سلالات البرسيم الحجازي الخمس من دفيئة في مايو 2021 إلى تجارب ميدانية مكررة في موقعين في مينيسوتا بالولايات المتحدة الأمريكية. وبالنسبة لمحصولي الحشة الأولى والثانية من كل موسم نمو، تم حصاد 10 سيقان من كل سلالة برسيم حجازي في مراحل النضج النباتي، وبداية التبرعم، وبداية التزهير، والتزهير، ومراحل القرون الخضراء. تم استئصال السلمية السابعة من قاعدة كل ساق ووضعها في أنبوب سعة 50 mL يحتوي على خليط بنسبة 50:50 من الإيثانول بنقاء 200 وماء فائق النقاء للتخزين حتى مرحلة تحضين المقاطع العرضية. وقد طُورت هذه الطريقة بناءً على عمل أجراه المختبر سابقاً في التسعينيات، حيث تم اختيار السلمية السابعة كوحدة للدراسة4,6.
In vitro تم استخدام الحضن المخبري مع سائل الكرش والصبغ النسيجي لسيقان البرسيم لاكتساب رؤية حول أنماط ترسيب مكونات الجدار الخلوي عبر أنسجة السيقان المتحللة. وقد حاكت عمليات الحضن in vitro مدى التحلل الذي تتعرض له ساق البرسيم في الكرش، بينما أبرز الصبغ النسيجي اللاحق وجود اللجنين والبكتين في الخلايا التي ظلت فيها هذه المكونات الجدارية قابلة للكشف بعد الهضم الميكروبي الموقوت. وقد ضمن استخدام الميكروتوم المنزلق (sliding microtome) توحيد سمك المقطع العرضي لتقليل عيوب التقطيع التي قد تؤثر على النتائج13. وعلى الرغم من فحص اللجنين والبكتين فقط في البروتوكول الحالي، يمكن أيضاً استخدام صبغات بديلة مثل toluidine blue و Astra blue و Direct Red 23 للصبغ النسيجي لهذه المكونات ومكونات جدار خلوي أخرى14,15,16. بالإضافة إلى ذلك، يمكن استخدام الضوء المستقطب للكشف عن السليلوز في الجدران الخلوية، كما يمكن للكواشف الفلورية مثل safranin O تصوير اللجنين17 والسكريات المتعددة للجدار الخلوي. علاوة على ذلك، يمكن استخدام الأجسام المضادة لوسم أنواع محددة من البكتين18. وإلى جانب البرسيم، يمكن تطبيق هذا البروتوكول على أنواع أخرى؛ ومع ذلك، قد تختلف استجابات الصبغ بين الأنواع والأنماط الوراثية ومراحل النمو والظروف البيئية19.
لقد سبق وصف استخدام شريط لاصق مزدوج الوجه منخفض التكلفة لتثبيت المقاطع العرضية للساق على شرائح زجاجية6,20. قبل البدء في بروتوكول الحضن in vitro هذا، كان من الضروري تحديد شريط لاصق مزدوج الوجه يمكنه تحمل الغمر في السائل لعدة أيام ويكون متاحاً بسهولة. تم تقييم عدة أنواع من الأشرطة اللاصقة التي تختلف في الاستخدام الصناعي المخصص لها وسماكتها. وباختصار، تم تثبيت قطع من الشريط اللاصق مزدوج الوجه بطول 1-inch ومقاطع عرضية للساق على شرائح زجاجية وغمرها في الماء لفترات متفاوتة على مدار أسبوع واحد لتحديد ما إذا كانت ستظل ملتصقة بالشرائح. انفصلت بعض الأشرطة اللاصقة مزدوجة الوجه عن الشرائح الزجاجية، بينما أصبح بعضها الآخر معتماً بعد التعرض الطويل للسائل. وقد أدى فقدان شفافية الشريط إلى تداخل مع الفحص المجهري ومنع الحصول على صور عالية الجودة للمقاطع العرضية للساق. وكان الشريط اللاصق المزدوج المصنوع من الفينيل هو الأفضل أداءً من بين المواد اللاصقة التي تم اختبارها. كان الشريط المستخدم في التجارب الأصلية قد تم شراؤه في التسعينيات وظل فعالاً؛ ومع ذلك، تعذر الحصول على المنتج نفسه للتجارب اللاحقة. لذلك، يجب اختبار الشريط المختار قبل استخدامه للتأكد من بقاء كل من الشريط والمقاطع العرضية ملتصقين طوال فترة الحضن. كما يجب أن يظل الشريط شفافاً للسماح بالحصول على صور عالية الجودة.
تضمن جزء الحضانة in vitro من البروتوكول خطوات متعددة حساسة للوقت تطلبت تخطيطاً وتنسيقاً دقيقين. قد يختلف إجمالي الوقت المطلوب لإجراء الحضانة in vitro بناءً على حجم التجربة. على سبيل المثال، لتوليد مجموعة بيانات قوية من المقاطع العرضية للسيقان، تم تثبيت أربعة سيقان برسيم حجازي فريدة على كل شريحة لكل عينة × فاصل زمني للحضانة in vitro × توليفة صبغية. ومع وجود 16 عينة، وستة فواصل زمنية للحضانة، وصبغتين، تطلب الأمر ما مجموعه 768 مقطعاً عرضياً للساق لكل دورة حضانة in vitro. استغرق تحضير الـ 768 مقطعاً عرضياً حوالي 8 h، والتي أمكن تخزينها بعد ذلك طوال الليل في أطباق بتري تحتوي على ماء فائق النقاء وتثبيتها في اليوم التالي. وقبل التثبيت، تطلب الأمر وضع علامات تعريفية على 192 شريحة زجاجية و 96 أنبوب طرد مركزي (50 mL). استغرق تثبيت المقاطع العرضية 8 h إضافية لأن المقاطع وُجهت بشكل متسق عبر الفواصل الزمنية للحضانة والصبغات لتسهيل المقارنات بين أنسجة الساق. تطلب هذا النهج وقتاً أطول من التثبيت العشوائي للمقاطع العرضية. خُزنت الشرائح المثبتة طوال الليل في ماء فائق النقاء قبل البدء في الحضانة in vitro في اليوم التالي. وبينما كان يتم تحضير وتثبيت المقاطع العرضية لساق البرسيم الحجازي، تطلب محلول McDougall المنظم التحضير أيضاً. يمكن تحضير المحلول المنظم قبل بدء الحضانة in vitro بمدة لا تزيد عن يومين، وتطلب تسخينه إلى 39 °C قبل تلقيح المقاطع العرضية المثبتة. وبالتالي، كان التخطيط والتحضير الدقيقان ضروريين لإتمام البروتوكول بنجاح.
تُستخدم صبغة ويزنر (Wiesner) بشكل شائع لتصور البنى المرتبطة باللجنين في الأنسجة النباتية. وعلى الرغم من أن طريقة الصبغ هذه بسيطة نسبيًا21 ومحددة بشكل معقول22، إلا أنها تصبغ مجموعات سينامالديهيد الطرفية المرتبطة بوحدات لجنين الغواياكيل (G)13. وفي كاسيات البذور ثنائية الفلقة مثل البرسيم الحجازي، تُعد وحدات G والسرينجيل (S) المكونات الأساسية لبوليمر اللجنين، رغم وجود وحدات فرعية ذات حلقة H أيضًا. لذا، قد تؤدي صبغة ويزنر إلى تقدير إجمالي اللجنين في الساق بأقل من قيمته الحقيقية لأنها لا تتفاعل مع لجنين S. قد تتواجد كل من وحدات G وS في خشب ما بين الحزم وألياف اللحاء الأولية (أي أنسجة السكلرنكيما)؛ وبناءً على ذلك، ورغم أن وحدات S قد لا تتفاعل مع صبغة ويزنر، فإن صبغ وحدات G يمكن أن يشير إلى وجود بنى مرتبطة باللجنين في هذه الأنسجة. ويمكن استخدام صبغة مولي (Mäule) لتصور وحدات S وتقديم تمثيل أكثر اكتمالاً لوحدات اللجنين في الساق13. كما قد يحدث تباين في كثافة صبغ البكتين بصبغة أحمر الرودينيوم اعتمادًا على حالة الأسترة أو إزالة الأسترة في حمض البكتيك23، حيث يمكن أن يتراوح الصبغ من درجة اللون الأصفر البرتقالي إلى اللون الأحمر الساطع. ونظرًا لأن أحمر الرودينيوم يمكن أن يتفاعل مع عدة كربوهيدرات، فإن استخدام هذه الصبغة قد يؤدي إلى تقدير كمية البكتين في الأنسجة بأكثر من قيمتها الحقيقية11. وبسبب زيادة نسبة اللجنين مع نضج ساق البرسيم الحجازي، قد يتداخل اللجنين أيضًا مع صبغ البكتين في السيقان الأكبر سنًا. وقد يصعب التمييز بصريًا بين درجات لون صبغة معينة؛ ومع ذلك، يمكن لتقنيات تحليل الصور أن تساعد في التغلب على هذا القصور.
بعد الحضانة in vitro مع سائل الكرش والتلوين النسيجي، يمكن فحص المقاطع العرضية للسيقان تحت المجهر، والتقاط الصور لإجراء التحليلات اللاحقة. ونظرًا لأن صبغة Wiesner تتلاشى خلال 24 h9، يجب إتمام تحليل المجهر ذو المجال المضيء (brightfield) للسيقان المصبوغة للكشف عن اللجنين في نفس يوم التلوين، ويفضل أن يكون ذلك خلال 6–8 h، لضمان اتساق التلوين عبر جميع الصور. أما تلوين الأحمر الروديوم (Ruthenium red) فيحافظ على شدته بمرور الوقت؛ لذا فإن التصوير في نفس اليوم يكون أقل أهمية. ومع ذلك، تم التقاط الصور المصبوغة بالأحمر الروديوم أيضًا خلال 6–8 h من أجل الاتساق. تم التقاط الصور باستخدام كاميرا مجهر رقمية ملونة عالية الدقة والوضوح مجهزة بمستشعر صور CMOS واسع النطاق. وقد تم استخدام نفس إعدادات التعريض، والكسب التماثلي (analog gain)، وعمق البت (bit depth)، وجودة الصورة، والتركيز لضمان القابلية للمقارنة بين الصور وتقليل التباين الناتج عن الاختلافات في إعدادات الالتقاط. تم ضبط وقت التعريض وفقًا للتكبير (10×، و20×، و40×) لمنع التعريض المفرط أو الناقص ولإنتاج صور عالية الجودة. بناءً على ذلك، يجب إجراء المقارنات بين الصور التي تم التقاطها بنفس التكبير لتقليل التباين المرتبط بإعدادات التعريض المختلفة. قد تتطلب إعدادات التصوير تعديلاً بناءً على المجهر والكاميرا المستخدمين (الجدول 1). كما استُخدمت تقنيات مجهرية أخرى، بما في ذلك المجهر الإلكتروني الماسح 6,20 والمجهر الفلوري14,15,17، لتصور مكونات الجدار الخلوي، على الرغم من استخدام المجهر ذو المجال المضيء في البروتوكول الحالي.
أنتج هذا البروتوكول مجموعة بيانات ضخمة من صور المقاطع العرضية للسيقان (>15,000)، والتي يمكن الاستفادة منها لتوسيع المعلومات النوعية الناتجة عن هذا البروتوكول باستخدام الصبغ النسيجي نحو التحليل الكمي باستخدام تقنيات التعلم الآلي. ويمكن لمسارات تحليل الصور الفعالة أن تعمل على أتمتة وتسريع استخراج البيانات الكمية من الصور. كما يمكن للتعاون مع علماء الحاسوب أن يسهل تطوير أدوات لمعالجة الصور مسبقاً، وإزالة الضوضاء الخارجية، واستخراج السمات ذات الاهتمام لمعالجة فرضيات متعددة. وتتطلب مناهج التعلم الآلي مجموعات بيانات تدريب واختبار مناسبة وبحجم كافٍ لضمان أداء قوي للنموذج. أما مجموعات البيانات الأصغر فيمكن تحليلها باستخدام مناهج أبسط لتحليل الصور، مثل القياس اليدوي للسمات ذات الاهتمام باستخدام برامج تحليل الصور مثل ImageJ24 أو باستخدام برنامج تحليل الصور المرتبط بالمجهر25. وبناءً على ذلك، فإن مراعاة الاستخدام اللاحق المقصود للصور يمكن أن يحسن الكفاءة في تحديد نوع وعدد الصور التي سيتم الحصول عليها، وكذلك المنهج التحليلي اللاحق.
الإفصاحات
يعلن المؤلفون أن البحث قد أُجري دون وجود أي علاقات تجارية أو مالية يمكن تفسيرها على أنها تضارب محتمل في المصالح. إن ذكر الأسماء التجارية أو المنتجات التجارية في هذا المنشور هو لغرض تقديم معلومات محددة فقط، ولا يعني توصية أو تأييداً من قبل وزارة الزراعة الأمريكية (USDA). وتعد وزارة الزراعة الأمريكية جهة توظيف ومزوداً للفرص المتكافئة. وقد امتثلت جميع التجارب للقوانين الحالية في الولايات المتحدة، وهي الدولة التي أُجريت فيها هذه التجارب.
شكر وتقدير
يقر المؤلفون بفضل R. Ted Jeo على رؤاه حول الأعمال السابقة ذات الصلة. والشكر موجه إلى مركز التصوير الجامعي في جامعة مينيسوتا - توين سيتييز لتوفير إمكانية الوصول إلى برامج الحصول على صور المجهر وتحليلها لإعداد الصور للنشر. تم دعم هذا العمل من قبل وزارة الزراعة في الولايات المتحدة – خدمة الأبحاث الزراعية [062-21500-001-000D] واتفاقية التعاون غير المساعد (رقم 58-5062-2-016).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| ورق ألومنيوم | ممشى خشبي | 7106BW | ١٨ بوصة × ١٠٠٠ قدم؛ تُستخدم لحماية محاليل الصبغ الحساسة للضوء من الضوء |
| كلوريد الكالسيوم ثنائي الهيدرات، بنقاء 99% كحد أدنى | Sigma Life Science | C7902-500G | رقم CAS 10035-04-8؛ كاشف لـ McDougall’المحلول المنظم s |
| برمجيات الكاميرا | Nikon | NIS-Elements AR 5.42.04 | برنامج تصوير بنظام 64 بت يُستخدم لالتقاط الصور وتحليلها |
| غاز ثاني أكسيد الكربون | Matheson | UN1013 | درجة الاستخدام العام؛ تُستخدم للحفاظ على الظروف اللاهوائية أثناء التحضير والحضانة |
| حمام مائي دوّار | الدقة | — | حمام مائي دوار مضبوط الحرارة يُستخدم للحفاظ على العينات عند 39 °C |
| معيار ساق الذرة | جامعة مينيسوتا | لا يوجد نص لترجمته. | حُصِدَت في خريف عام 2023 في سانت بول، مينيسوتا، الولايات المتحدة الأمريكية؛ وطُحِنَت إلى حجم 1 مم واستُخدِمَت كركيزة ميكروبية |
| غطاء زجاجي | Thermo Scientific | 3419 | 24 مم × 30 مم، سمك رقم 1.5، 1 أونصة |
| كاميرا المجهر الملونة Digital Sight 10 المزودة بمستشعر صور CMOS بتنسيق FX الكبير | Nikon | MQA20000 | كاميرا ألوان رقمية تُستخدم لالتقاط صور مجهرية بالمجال المضيء |
| مجهر تشريحي | Nikon | SMZ18 | مجهر ستيريو يستخدم لتوجيه وتحديد موضع المقاطع العرضية للساق |
| شريط لاصق من الجهتين | شريط SelloTape Office Vinyl لاصق من الجهتين | 4270 | ٢ ملم × 53 م؛ تُستخدم لتثبيت المقاطع العرضية للساق على شرائح زجاجية |
| ميزان كهربائي | و | GH-202 | ميزان تحليلي بدقة قراءة تصل إلى أربعة منازل عشرية |
| دورق إرلنماير (125 مل) | Kimax | 25600 | دورق سعة 125 مل؛ متوافق مع سدادة رقم 5 |
| دورق إرلنماير (25 مل) | بايركس (Pyrex) | 4980 | دورق سعة 25 مل؛ متوافق مع سدادة رقم 0 |
| إيثانول (200 درجة نقاوة) | Fisher Scientific | 04-355-720 | إيثانول مطلق يُستخدم لتحضير محاليل الصبغ وعمليات الشطف التي تسبق الصبغ |
| عزل الرغوة الصلبة من البوليسترين المبثوق | Owens Corning | 1407788 | ١ بوصة × ٢ قدم × لوح رغوي مقاس 2 قدم، من النوع R-5، وبضغط 15 PSI؛ يُستخدم لدعم السلالم البينية للساق أثناء عملية التقطيع |
| ملاقط | Fisher Scientific | 10-316A | ملاقط مختبرية تُستخدم للتعامل مع قطع الساق، والشرائح، والمقاطع المثبتة |
| شرائح زجاجية | FisherBrand | 125503 | ٢٥ مم × ٧٥ ملم × 1 مم؛ تُستخدم لتثبيت المقاطع العرضية للساق |
| دورق كروي (6 لتر) | Pyrex | CLS43205L-4EA | دورق زجاجي سعة 6 لتر يُستخدم لتحضير أو مناولة أحجام أكبر من المحاليل |
| جليسيرين، سائل بدرجة مخبرية | فيشر للتعليم العلمي | 525342C | رقم CAS 56-81-5؛ الغليسرول المستخدم في محاليل التثبيت والتخزين |
| شاش جبني مزدوج الطبقات بدرجة 50 | متجر JINIOHEE | B0FL27KXRN | قطن بنسبة 100%، مبيّض باللون الأبيض؛ يُستخدم لترشيح مواد الكرش وسوائل الكرش |
| مخبار مدرج (10 مل) | بايركس (Pyrex) | 700024 | مخبار مدرج سعة 10 مل يُستخدم لقياس أحجام السوائل |
| حمض الهيدروكلوريك | فيشر | A1445-500 | رقم التسجيل الكيميائي (CAS No.) 7647-01-0؛ يُستخدم مع الفلوروغلوسينول لتحضير صبغة ويزنر (Wiesner stain) |
| قلم تحديد دائم فائق الجودة للاستخدامات الصناعية | قلم شاربي (Sharpie) | 13601 | رأس دقيق؛ يستخدم لتعليم أنابيب الحضن بعلامات مقاومة للماء |
| هيدرات هيدروكلوريد L-سيستين | Sigma-Aldrich | C121800-10G | رقم تسجيل خدمة المستخلصات الكيميائية (CAS No.) 345909-32-2؛ عامل مختزل يُستخدم في تحضير محلول الحضن |
| مناديل منخفضة الوبر | Kimberly-Clark | 34155 | ٤.٥ بوصة × ٨.٥ بوصة؛ تُستخدم لتجفيف السوائل الزائدة من الشرائح دون ترك ألياف |
| شفرة ميكروتوم منخفضة البروفيل | Leica 819 | 63065-LP | شفرة بديلة منخفضة البروفيل تُستخدم لتحضير مقاطع عرضية موحدة للساق |
| كبريتات المغنيسيوم سباعية الهيدرات | Fisher Chemical | M80-500 | رقم تسجيل خدمة ملخصات المواد الكيميائية (CAS No.) 10034-99-8؛ كاشف لطريقة McDougall’محلول منظم s |
| قضيب تحريك مغناطيسي | Fisher Scientific | 03-411-783 | ٧٦ مم × 12 مم؛ تُستخدم لخلط المحلول المنظم ومحاليل التلقيح |
| ملصقات عناوين المراسلة | أفيري | 5167 | 1/2 بوصة × 1 3/4 بوصة؛ تُستخدم لتحديد هوية العينات والشرائح |
| فرشاة طلاء | لو-كورنيل | — | فرشاة مستديرة ناعمة من سلسلة 7000، رقم 3؛ تُستخدم لنقل المقاطع العرضية للساق والتعامل معها |
| أطباق بتري مع أغطيتها | أدوات مختبر Becton Dickinson | 81731119 | ٦٠ مم × 15 مم؛ تُستخدم للتخزين المؤقت للمقاطع العرضية للساق في ماء فائق النقاء |
| فلوروغلوسينول، 1،3،5-تراي هيدروكسي بنزين | Sigma-Aldrich | P3502-25G | رقم تسجيل ملخصات المواد الكيميائية (CAS No.) 108-73-6؛ كاشف يُستخدم لتحضير صبغة ويزنر (Wiesner stain) |
| ماصة (100 μL) | Gilson | P 1000؛ 767547M | ماصة ذات حجم قابل للتعديل تُستخدم لتوزيع محاليل الصبغ |
| قمع بلاستيكي متعدد الاستخدامات | Nalgene | 10-437-23E | 150 ملم؛ تُستخدم لنقل الكواشف والترشيح |
| كأس بيكر من البولي بروبيلين (4 لتر) | Nalgene | 1201-4000 | كأس زجاجي سعة 4 لتر مقاوم للمواد الكيميائية، يُستخدم لتحضير وخلط محاليل التلقيح |
| كلوريد البوتاسيوم | Fisher Chemical | P217-500 | رقم CAS 7447-40-7؛ كاشف لطريقة ماكدوغال (McDougall)’محلول منظم s |
| شفرات الحلاقة | برسونا (Personna) | 66-0089 | بِسُمك 0.009 بوصة؛ تُستخدم للتقليم اليدوي لمواد الساق |
| أحمر الروديوم، أوكسي كلوريد الروديوم الأمونيومي | سيجما (Sigma) | R-2751 | رقم CAS 11103-72-3؛ صبغة نسيجية تُستخدم لتصوير المواد البكتينية |
| مقص | Fiskars | 1063071 | مقصات عامة الأغراض تُستخدم لقص الشريط والرغوة والمواد الاستهلاكية الأخرى |
| أنابيب طرد مركزي مخروطية ذات غطاء لولبي (50 مل) | Corning | 430828 | بولي بروبيلين، غير مولد للحمى؛ يُستخدم لحفظ العينات، والتحضين، والشطف، والتخزين |
| ميكروتوم سلدج (Sledge microtome) | Leica | 2000R | ميكروتوم منزلق/زلاقة يُستخدم لتحضير 100 μm-مقاطع عرضية سميكة للساق |
| بيكربونات الصوديوم، درجة ACS | Fisher Chemical | S233-3 | رقم CAS 144-55-8؛ كاشف لطريقة ماكدوغال (McDougall)’محلول منظم (buffer) |
| كلوريد الصوديوم | Fisher Chemical | — | رقم تسجيل خدمة المواد الكيميائية (CAS No.) 7647-14-5؛ كاشف لطريقة ماكدوغال (McDougall)’محلول منظم s |
| هيدروكسيد الصوديوم | Fisher Chemical | S318-500 | رقم تسجيل خدمة ملخصات الكيماويات (CAS No.) 1310-73-2؛ يُستخدم في تحضير المحلول المختزل |
| فوسفات الصوديوم ثنائية القاعدة اللامائية (Na2التحسين الفائق للمعلمات4) | Sigma Aldrich | S-9763 | CAS 7558-79-4 |
| كبريتيد الصوديوم اللامائي، ACS، بنسبة 98.0% كحد أدنى | Oakwood Chemicals | 245960 | رقم CAS 1313-84-4؛ عامل مختزل يُستخدم في تحضير محلول الحضن |
| ملعقة مختبر من نوع Spoonula | Fisher Scientific | 14-375-10 | ملعقة مختبرية تُستخدم لنقل الكواشف المسحوقة |
| لوح تحريك | Thermolyne من شركة Sybron | 7200 | لوح تحريك مغناطيسي يستخدم لخلط المحاليل المنظمة ومحاليل التلقيح |
| حقنة (60 مل) ذات إبرة عريضة | Monoject | 935401028 | حقنة سعة 60 مل مع إبرة واسعة التجويف تُستخدم لتوزيع محلول التلقيح |
| حوامل أنابيب الاختبار | Thermo Scientific | 14-809-44 | حوامل تُستخدم لتنظيم ودعم أنابيب حضن سعة 50 مل |
| ميزان الحرارة | FisherBrand | 13201663 | ميزان حرارة مختبري يُستخدم للتحقق من درجة حرارة المحلول والحمام المائي |
| مجهر قائم | Nikon | إيكليبس Ni | مجهر المجال المضيء القائم المستخدم لتصوير ومعاينة المقاطع العرضية المصبوغة للساق |
| مضخة خدمات عامة | شركة Little Giant Pump Co. | 502203 | طراز 2E-38N؛ 115 فولت تيار متردد، 60 هرتز، 1.7 أمبير؛ يُستخدم لتدوير المياه والحفاظ على درجة حرارة موحدة للحمام المائي |
| ورق وزن | VWR Scientific Products | 12578-165 | ورق وزن مخصص للاستخدام مرة واحدة، يُستخدم لوزن ونقل الكاشفات الصلبة وركيزة سيقان الذرة |
المراجع
- Cosgrove DJ. Growth of the plant cell wall. Nature Reviews Molecular Cell Biology. 2005;6(11):850-861.
- Moore KJ, Jung H-JG. Lignin and fiber digestion. Journal of Range Management. 2001;54(4):420-430.
- Barros J, Serk H, Granlund I, Pesquet E. The cell biology of lignification in higher plants. Annals of Botany. 2015;115(7):1053-1074.
- Jung HG, Engels FM. Alfalfa stem tissues: cell wall deposition, composition, and degradability. Crop Science. 2002;42(2):524-534.
- Jung HG, Lamb JFS. Stem morphological and cell wall traits associated with divergent in vitro neutral detergent fiber digestibility in alfalfa clones. Crop Science. 2006;46(5):2054-2061.
- Engels FM, Jung HG. Alfalfa stem tissues: cell-wall development and lignification. Annals of Botany. 1998;82(5):561-568.
- Akin DE. Section to slide technique for study of forage anatomy and digestion. Crop Science. 1982;22(2):444-446.
- Jung HG, Deetz DA. Cell wall lignification and degradability. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:315-346.
- Blaschek L, et al. Cellular and genetic regulation of coniferaldehyde incorporation in lignin of herbaceous and woody plants by quantitative Wiesner staining. Frontiers in Plant Science. 2020;11:109.
- Blaschek L, et al. Different combinations of laccase paralogs nonredundantly control the amount and composition of lignin in specific cell types and cell wall layers in Arabidopsis. The Plant Cell. 2023;35(2):889-909.
- Nevins DJ. Analysis of forage cell wall polysaccharides. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:105-132.
- Xu Z, Heuschele DJ, Lamb JFS, Jung H-JG, Samac DA. Improved forage quality in alfalfa (Medicago sativa L.) via selection for increased stem fiber digestibility. Agronomy. 2023;13(3):770.
- Pradhan Mitra P, Loqué D. Histochemical staining of Arabidopsis thaliana secondary cell wall elements. Journal of Visualized Experiments. 2014;(87):51381.
- De Micco V, Aronne G. Combined histochemistry and autofluorescence for identifying lignin distribution in cell walls. Biotechnic & Histochemistry. 2007;82(4–5):209-216.
- Kraus JE, et al. Astra Blue and Basic Fuchsin double staining of plant materials. Biotechnic & Histochemistry. 1998;73(5):235-243.
- Ursache R, Andersen TG, Marhavý P, Geldner N. A protocol for combining fluorescent proteins with histological stains for diverse cell wall components. The Plant Journal. 2018;93(2):399-412.
- Baldacci-Cresp F, et al. A rapid and quantitative safranin-based fluorescent microscopy method to evaluate cell wall lignification. The Plant Journal. 2020;102(5):1074-1089.
- Casero PJ, Knox JP. The monoclonal antibody JIM5 indicates patterns of pectin deposition in relation to pit fields at the plasma-membrane-face of tomato pericarp cell walls. Protoplasma. 1995;188(1-2):133-137.
- Pesquet E, Cesarino I, Kajita S, Pawlowski K. Physiological roles of lignins – tuning cell wall hygroscopy and biomechanics. New Phytologist. 2025;248(6):2674-2706.
- Jung HG, Engels FM. Alfalfa stem tissues: rate and extent of cell-wall thinning during ruminal degradation. NJAS: Wageningen Journal of Life Sciences. 2001;49(1):3-13.
- Yeung EC. A beginner’s guide to the study of plant structure. Tested Studies for Laboratory Teaching. 1998;19:125-142.
- Jensen, W.A. Botanical Histochemistry: Principles and Practice. Freeman W.H. & Co. San Francisco, CA. (1962).
- Ruzin, SE. Plant Microtechnique and Microscopy. Oxford University Press; New York, NY; 1999.
- Gronwald JW, Bucciarelli B. Comparison of stem morphology and anatomy of two alfalfa clonal lines exhibiting divergent cell wall composition. Journal of the Science of Food and Agriculture. 2013;93(11):2858-2863.
- Dai R, et al. Overexpression MsJAR1 gene increased lateral branches and plant height in alfalfa (Medicago sativa L.). Scientific Reports. 2025;15(1):16956.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً