تقدم هذه المقالة سير عمل معلوماتي حيوي قابل للتكرار يدمج مجموعات بيانات ترانسكريبتومية عامة، والتعلم الآلي، والتحقق الخارجي، وتفاعل البوليميراز المتسلسل الكمي مع النسخ العكسي، وفحص خريطة الاتصال (Connectivity Map)، والرسو الجزيئي لتحديد المؤشرات الحيوية لارتفاع ضغط الدم الرئوي والمركبات العلاجية المرشحة.
مقالة بحثية
تحديد المؤشرات الحيوية والمركبات العلاجية المرشحة لارتفاع ضغط الدم الرئوي باستخدام المعلوماتية الحيوية والتعلم الآلي
في هذه المقالة
ملخص
الملخص
هدفت هذه الدراسة إلى تحديد المؤشرات الحيوية الجزيئية المرتبطة بارتفاع ضغط الدم الرئوي (PH) والمركبات الجزيئية الصغيرة المرشحة باستخدام بيانات النسخ العامة وموارد التحقق المستقلة. تم دمج ثلاث مجموعات بيانات من Gene Expression Omnibus وهي (GSE22356 وGSE33463 وGSE48149) بعد إجراء عمليات التسوية، وتوصيف المجسات، وتصحيح تأثير الدفعة باستخدام ComBat. واستُخدم تحليل التعبير التفاضلي، وتحليل شبكة التعبير الجيني المشترك الموزون، وتحليل الإثراء الوظيفي، وتحليل شبكة التفاعل بين البروتينات، وثلاث خوارزميات للتعلم الآلي لتحديد جينات الميزات الأساسية. كما تم تقييم الأداء التشخيصي باستخدام منحنيات خصائص تشغيل المستقبل. وشمل التحقق الخارجي مجموعة مستقلة من أنسجة الرئة (GSE117261)، ومجموعة بيانات تسلسل RNA أحادي الخلية للشريان الرئوي (GSE210248)، والتحقق باستخدام تفاعل البوليميراز المتسلسل النسخي العكسي الكمي في عينات مستقلة من أنسجة الرئة. واستُخدمت إعادة تموضع الأدوية القائمة على خريطة الاتصال (Connectivity Map) والالتحام الجزيئي لفحص المركبات المرشحة. تم تحديد ثمانية وسبعين جينًا ذات تعبير تفاضلي، واختيرت الجينات CXCL10 وJUN وIFIH1 وMX1 وTLR7 كجينات ميزات أساسية. وفي مجموعة أنسجة الرئة المستقلة GSE117261، أظهر جين JUN أقوى دعم خارجي، بينما كان تكرار الجينات الأخرى متغيرًا. وأكد تفاعل البوليميراز المتسلسل النسخي العكسي الكمي في 20 عينة بيولوجية مستقلة من ارتفاع ضغط الدم الشرياني الرئوي و20 عينة ضابطة زيادة تنظيم جميع الجينات الخمسة. وأعطى نموذج qRT-PCR الظاهري المكون من خمسة جينات وتحليلات التحقق المتقاطع الخماسية الطبقية المكررة 100 مرة مساحة تحت المنحنى قدرها 1.000، رغم أن صغر حجم المجموعة يتطلب تفسيرًا حذرًا وتحققًا استباقيًا مستقلًا. ودعم التحليل أحادي الخلية لـ GSE210248 تغير التواصل بين الخلايا المناعية والهيكلية والتحول المظهري لخلايا العضلات الملساء. وقد احتل BRD-K91900765/VX-745 المرتبة الأعلى في فحص خريطة الاتصال. تم إدراج MAPK14/p38α، وهو هدفه الدوائي المعروف، كبروتين التحام مرجعي إيجابي، بينما عومل الالتحام ضد البروتينات الخمسة المرتبطة بالمؤشرات الحيوية كدراسة استكشافية. تدعم هذه النتائج الجينات الخمسة كمؤشرات حيوية مرشحة لارتفاع ضغط الدم الرئوي، وVX-745 كفرضية حاسوبية لإعادة تموضع الدواء تتطلب تحققًا تجريبيًا.
المقدمة
يُعد ارتفاع ضغط الدم الرئوي (PH) متلازمة قلبية رئوية مترقية تتميز بارتفاع مستمر في ضغط الشريان الرئوي، وزيادة في المقاومة الوعائية الرئوية، وفشل في البطين الأيمن في نهاية المطاف. وتحدد المعايير الهيموديناميكية الحالية ارتفاع ضغط الدم الرئوي بأنه متوسط ضغط الشريان الرئوي في حالة الراحة بمقدار >20 mmHg، وفقاً لما يتم قياسه عن طريق قسطرة القلب الأيمن1. ومن بين الأنواع السريرية المختلفة، يُعد ارتفاع ضغط الدم الشرياني الرئوي (PAH) أحد أخطر الأشكال، ويتميز بإعادة تشكيل وعائية رئوية مترقية. وتشمل سماته المرضية خلل الوظائف البطانية، والتكاثر والهجرة غير الطبيعية لخلايا العضلات الملساء في الشرايين الرئوية، وتنشيط الأرومات الليفية في الغلالة البرانية، وترسب المصفوفة خارج الخلية، وتسلل الخلايا الالتهابية، وتضيق أو انسداد الشرايين الرئوية الطرفية2. وتشير هذه التغيرات إلى أن PH/PAH ليس مجرد اضطراب في تضيق الأوعية، بل هو مرض إعادة تشكيل وعائية معقد تقوده آليات جزيئية وخلوية ومناعية التهابية منسقة.
تستهدف علاجات ارتفاع ضغط الدم الشرياني الرئوي (PAH) الحالية بشكل أساسي مسارات البروستاسيكلين، والإندوثيلين، وأكسيد النيتريك-سيكلاز الغوانيلات الذائب، والفوسفودايستريز من النوع 53˒4. وعلى الرغم من أن هذه العلاجات تعمل على تحسين الأعراض والقدرة على ممارسة التمارين الرياضية والمعايير الهيموديناميكية، إلا أن تأثيراتها تظل في الغالب موسعة للأوعية الدموية وهيموديناميكية. كما أن قدرتها على عكس إعادة تشكيل الأوعية الدموية الرئوية المستقرة محدودة، ولا يزال العديد من المرضى يعانون من تطور المرض رغم العلاج المركب. وبناءً على ذلك، يمثل تحديد مؤشرات حيوية جزيئية ومرشحات علاجية جديدة تعكس عملية إعادة التشكيل حاجة ملحة لم يتم تلبيتها. وبوجه خاص، ظهر التنشيط المناعي الالتهابي، وإشارات الإنترفيرون، ومسارات مستقبلات Toll-like، والتجنيد المناعي بوساطة الكيموكينات، والتحول المظهري للخلايا العضلية الملساء كعوامل مساهمة محتملة في تطور PH/PAH5˒6.
توفر مجموعات بيانات النسخ عالية الإنتاجية موارد قيمة لتحديد البصمات الجزيئية المرتبطة بالأمراض في حالات ارتفاع ضغط الدم الرئوي (PH) وارتفاع ضغط الدم الشرياني الرئوي (PAH). ومع ذلك، غالبًا ما تكون الدراسات القائمة على مجموعة بيانات واحدة محدودة بسبب صغر حجم العينات، وتأثيرات الدفعات، وعدم تجانس المنصات، وعدم كفاية التحقق من الصحة. يمكن لتحليل التعبير التفاضلي تحديد الجينات ذات التعبير المتغير، ولكنه قد لا يستوعب بشكل كامل وحدات التعبير المشترك المرتبطة بالمرض أو التفاعلات على مستوى الشبكة. ويمكن لتحليل شبكة التعبير الجيني المشترك الموزونة (WGCNA) تحديد وحدات جينية مرتبطة بسمات المرض، بينما يمكن لتحليل شبكة التفاعل بين البروتينات (PPI) الكشف عن الجينات عالية الاتصال داخل الشبكات البيولوجية. كما يمكن لأساليب التعلم الآلي تحديد أولويات الجينات ذات القيمة التشخيصية أو التصنيفية. ومع ذلك، فإن الاعتماد على خوارزمية واحدة قد يؤدي إلى تحيز خاص بالنموذج. لذا، فإن دمج تحليل التعبير التفاضلي، وWGCNA، وتحليل شبكة PPI، وخوارزميات التعلم الآلي المتعددة قد يعزز من قوة اكتشاف المؤشرات الحيوية.
يتمثل تحدٍ رئيسي آخر في دراسات المؤشرات الحيوية للترانسكريبتوم في التفسير البيولوجي؛ فقد تعكس إشارات الأنسجة الكلية (Bulk-tissue) تغيرات في التعبير الجيني داخل الخلايا الوعائية المقيمة، أو تسلل الخلايا المناعية، أو تغير نسب المجموعات الخلوية المتعددة. ويوفر تسلسل الحمض النووي الريبي أحادي الخلية (Single-cell RNA sequencing) فرصة لوضع الجينات المرشحة المستمدة من الأنسجة الكلية ضمن سياق خلوي. ففي حالات ارتفاع ضغط الدم الرئوي (PH) وارتفاع ضغط الدم الشرياني الرئوي (PAH)، يتضمن إعادة تشكيل الأوعية الدموية الرئوية الخلايا البطانية، وخلايا العضلات الملساء، والأرومات الليفية، والخلايا الوحيدة/البلعمية، والخلايا اللمفاوية، وخلايا مناعية أو هيكلية أخرى. كما يرتبط تطور المرض بتغير التواصل بين الخلايا والتحول المظهري لخلايا العضلات الملساء. وبناءً على ذلك، فإن الجمع بين الفرز الترانسكريبتومي للأنسجة الكلية والتحقق أحادي الخلية قد يساعد في تحديد ما إذا كانت المؤشرات الحيوية المرشحة مرتبطة بالتنشيط المناعي، أو إعادة التشكيل الهيكلي للأوعية الدموية، أو خلل في التواصل متعدد الخلايا.
بالإضافة إلى اكتشاف المؤشرات الحيوية، يمكن استخدام التواقيع النسخية في إعادة توظيف الأدوية حاسوبيًا. تربط خريطة الاتصال (CMap) ملفات التعبير الجيني المرتبطة بالأمراض بالجزيئات الصغيرة التي قد تعكس تلك التواقيع أو تعدلها7. وعندما تقترن هذه الاستراتيجية بتنظيم المركبات والرسو الجزيئي، يمكنها توليد فرضيات علاجية قابلة للاختبار تجريبيًا. ورغم أن تنبؤات CMap والرسو الجزيئي لا يمكنهما إثبات فعالية الدواء، إلا أنهما يستطيعان تحديد أولويات المركبات المرشحة لاختبارات ربط الأهداف المستقبلية، والتجارب القائمة على الخلايا، والتحقق من صحتها باستخدام النماذج الحيوانية.
تم تطوير سير عمل متكامل وقابل للتكرار لتحديد المؤشرات الحيوية لمرض ارتفاع ضغط الدم الرئوي/ارتفاع ضغط الدم الرئوي الشرياني (PH/PAH) والمركبات العلاجية المرشحة. تم دمج ثلاث مجموعات بيانات ترانسكريبتومية عامة من قاعدة بيانات Gene Expression Omnibus بعد إجراء عمليات التسوية وتصحيح تأثير الدفعة. واستُخدم تحليل التعبير التفاضلي، وتحليل شبكة التعبير الجيني المشترك الموزون (WGCNA)، وتحليل الإثراء الوظيفي، وتحليل شبكة التفاعل البروتيني-البروتيني (PPI)، وثلاث خوارزميات للتعلم الآلي لفحص الجينات المتميزة القوية. كما استُخدم تحليل منحنى خصائص التشغيل للمستقبل (ROC)، ومجموعة تحقق مستقلة من أنسجة الرئة، وأدلة تسلسل الحمض النووي الريبي أحادي الخلية (scRNA-sequencing) للشريان الرئوي، والتحقق الكمي بواسطة تفاعل البوليميراز المتسلسل للنسخ العكسي (qRT-PCR) في عينات مستقلة لمزيد من التقييم للجينات المختارة. وأخيرًا، تم تطبيق إعادة توظيف الأدوية بناءً على خريطة المركبات الصغيرة (CMap) والرسو الجزيئي لتحديد المركبات المرشحة. تكمن جدة هذه الدراسة في إطار التحقق متعدد الطبقات، الذي يربط بين الاكتشاف الترانسكريبتومي الشامل، وتحديد الأولويات باستخدام التعلم الآلي، والتحقق المستقل، والتأكيد التجريبي بواسطة qRT-PCR، والتفسير الميكانيكي أحادي الخلية، والفحص الحاسوبي للمركبات. كانت فرضية الدراسة أن PH/PAH يُحركه برنامج منسق من الالتهاب المناعي وإعادة تشكيل الأوعية الدموية، وأن الجينات القوية ضمن هذا البرنامج قد تعمل كمؤشرات حيوية مرشحة وتوفر فرصًا لإعادة توظيف الأدوية.
البروتوكول
احتوت مجموعات البيانات العامة من مستودع التعبير الجيني (Gene Expression Omnibus (GEO)) التي تم تحليلها في هذه الدراسة على بيانات ترانسكريبتومية مجهولة الهوية من دراسات نُشرت سابقاً، ولم تتطلب موافقة أخلاقية إضافية. وقد وافقت لجنة الأخلاقيات بجامعة Huaihua على دراسة التحقق المستقلة باستخدام تفاعل البوليميراز المتسلسل الكمي باستخدام النسخ العكسي (qRT-PCR) على أنسجة الرئة البشرية (رقم الموافقة 2024(A05112)). كما تم الحصول على موافقة كتابية مستنيرة من جميع المشاركين أو ممثليهم المفوضين قانوناً قبل جمع العينات. وقد طُبقت إجراءات الموافقة والرضا على جميع عينات أنسجة الرئة البالغ عددها 20 عينة لمرض ارتفاع ضغط الدم الشرياني الرئوي (PAH) و20 عينة ضابطة شملها التحقق بواسطة qRT-PCR. تدرج أدوات البحث المستخدمة في هذا البروتوكول في الـ جدول المواد.
1. جمع ومعالجة مجموعات البيانات النسخية العامة مسبقاً
تم الحصول على مجموعات بيانات المصفوفات الدقيقة GSE22356 وGSE33463 وGSE48149 المتعلقة بفرط ضغط الدم الرئوي (PH) من قاعدة بيانات GEO. واستُخلصت عينات فرط ضغط الدم الرئوي/فرط ضغط الدم الشرياني الرئوي (PAH) وعينات الضبط وفقاً لتوصيفات النمط الظاهري الأصلية. كما تم تنزيل مصفوفات التعبير وملفات توصيف المنصة باستخدام برمجيات R القابلة للتكرار وحزمة GEOquery.
تم إجراء تعليق المسبارات ومطابقة رموز الجينات بشكل متسق عبر مجموعات البيانات. وعندما تطابقت مسبارات متعددة مع الجين نفسه، تم حساب قيمة التعبير المتوسطة. كما طُبقت عملية تسوية المئينات (Quantile normalization)، وتمت إزالة الجينات ذات التعبير المنخفض أو التباين المنخفض. ثم دُمجت مجموعات البيانات، وصُححت تأثيرات الدفعات (batch effects) باستخدام خوارزمية ComBat في حزمة sva8. وتم تقييم التصحيح باستخدام المخططات الصندوقية وتحليل المكونات الرئيسية.
2. تحديد الجينات ذات التعبير المتباين
استُخدمت حزمة limma لمقارنة مستويات التعبير بين عينات PH والعينات الضابطة في مصفوفة التعبير المصححة من تأثيرات الدفعات.9تم تطبيق نموذج خطي، واستُخدمت إحصائيات بايز التجريبية. وقد حُددت الجينات ذات التعبير المتباين باستخدام قيمة معدلة P قيمة <0.05 وتغير طي لوغاريتمي مطلق (log2 fold change) > 0.585. تم تصور النتائج باستخدام مخططات البركان والخرائط الحرارية.
3. بناء شبكة التعبير الجيني المشترك الموزونة
تم بناء شبكة التعبير الجيني المشترك المرجحة باستخدام حزمة WGCNA10. أُجري تجميع للعينات للكشف عن القيم المتطرفة. تم اختيار قوة العتبة اللينة بناءً على مؤشر ملاءمة الطوبولوجيا الخالية من المقياس. حُددت الوحدات الجينية باستخدام خوارزمية قطع الشجرة الديناميكية. تم ربط الجينات الذاتية للوحدات بالنمط الظاهري لـ PH، واختيرت الوحدة المرتبطة بالمرض والتي أظهرت أقوى ارتباط. ثم تم تقاطع الجينات الموجودة في الوحدة الرئيسية مع الجينات ذات التعبير المتباين للحصول على الجينات المتفق عليها.
4. تحليل الإثراء الوظيفي
تم تحليل فئات العملية البيولوجية والمكون الخلوي والوظيفة الجزيئية في وجود Gene Ontology باستخدام clusterProfiler11. كما أُجري تحليل إثراء المسارات باستخدام Kyoto Encyclopedia of Genes and Genomes لتحديد مسارات الإشارات12. استُخدمت قيمة P < 0.05 وقيمة q < 0.2 كحدود للإثراء، وتم تمثيل المصطلحات المثرية بصرياً باستخدام مخططات الفقاعات11.
5. بناء شبكة تفاعلات البروتين-البروتين وتحديد الجينات المركزية
تم تقديم قائمة الجينات المتفق عليها إلى قاعدة بيانات STRING، مع اختيار Homo sapiens كنوع، وعتبة ثقة للتفاعل > 0.413. تم استيراد ملف التفاعل إلى برنامج Cytoscape، واستُخدمت إضافة CytoHubba لترتيب الجينات حسب درجة العقدة. وقد عُرِفت الجينات عالية الاتصال بأنها جينات مركزية (hub genes).
6. اختيار الجينات ذات السمات التشخيصية باستخدام التعلم الآلي
تم تطبيق ثلاث خوارزميات مستقلة لاختيار الميزات. أولاً، أُجري تحليل الانحدار اللوجستي باستخدام مشغل تقليص واختيار الحد الأدنى (lasso) عبر حزمة glmnet والتحقق المتقاطع بمقدار 10 طيات لتحديد الجينات ذات المعاملات غير الصفرية14. ثانياً، طُبق نظام إزالة الميزات المتكرر باستخدام آلات المتجهات الداعمة لإزالة الميزات الزائدة واختيار مجموعة الميزات الفرعية التي حققت أعلى دقة في التحقق المتقاطع15. ثالثاً، تم بناء نموذج الغابة العشوائية، وصُنفت الميزات وفقاً لمتوسط الانخفاض في شوائب جيني (Gini impurity)16. واستُخدم تقاطع مجموعات الجينات المستمدة من الخوارزميات الثلاث لتحديد المجموعة النهائية من جينات الميزات الأساسية. كما استُخدمت حزمة pROC لإنشاء منحنيات خصائص التشغيل للمستقبل وحساب قيم المساحة تحت المنحنى17.
7. التحقق من صحة الجينات الجوهرية باستخدام مجموعات بيانات مستقلة للكتلة والخلية الواحدة
استُخدمت مجموعة GSE117261 كجموعة تحقق خارجية مستقلة لأنسجة الرئة، وهي تحتوي على 58 عينة من PAH و25 عينة ضابطة من متبرعين فاشلين18. ولم تُستخدم مجموعة البيانات هذه في تحليل التعبير التفاضلي للاكتشاف، أو بناء شبكة التعبير الجيني المرجحة المشتركة، أو اختيار الميزات باستخدام تعلم الآلة. تم تطبيع مصفوفة التعبير وتزويدها بالتعليقات التوضيحية، وحُلل التعبير التفاضلي باستخدام limma v3.68.0. كما طُبق تصحيح معدل الاكتشاف الكاذب بطريقة Benjamini-Hochberg على كامل النسخ الجيني الموضح بالتعليقات التوضيحية. وحُسبت منحنيات خصائص تشغيل المستقبل (ROC) للجينات المفردة باستخدام pROC v1.19.0.1، وفواصل ثقة DeLong بنسبة 95%، ونقاط القطع بناءً على مؤشر Youden. كما تم تطبيق نموذج انحدار لوجستي استكشافي مكون من خمسة جينات ضمن GSE117261، وجرى تقييم أدائه الداخلي إضافياً باستخدام التحقق المتقاطع المتداخل والمتكرر.
استُخدمت مجموعة بيانات GSE210248 (الجدول 1>) كمجموعة بيانات تحقق من الخلايا المفردة في الشريان الرئوي، والتي تحتوي على عينات من ثلاثة مرضى مصابين بـ PAH وثلاثة متبرعين أصحاء19. تمت معالجة البيانات باستخدام Seurat v5.5.1 لغرض مراقبة الجودة، والتطبيع (normalization)، وخفض الأبعاد، والتجميع (clustering)، وتصنيف الخلايا20. تم تحديد المجموعات الخلوية الرئيسية، بما في ذلك الخلايا البطانية، وخلايا العضلات الملساء، والأرومات الليفية، والخلايا الوحيدة/البلعمية، وخلايا T/الخلايا القاتلة الطبيعية. حُلل التواصل بين الخلايا باستخدام CellChat v2.1.2 وقاعدة بيانات الربيطة والمستقبل CellChatDB.human21. أُنشئ كائن CellChat من مصفوفة تعبير Seurat المُنظّمة والبيانات الوصفية لأنواع الخلايا. تم تحديد الجينات المفرطة التعبير وتفاعلات الربيطة والمستقبل؛ وحُسبت احتمالات التواصل؛ وأُزيلت التفاعلات التي تشمل مجموعات خلوية تحتوي على أقل من 10 خلايا؛ ثم استُنتجت شبكات التواصل على مستوى المسار وجُمِعت. استُخدمت مجموعة البيانات هذه فقط للتحقق الميكانيكي الخارجي وليس لتدريب النموذج.
| عنصر | الوصف |
| مجموعة البيانات | GSE210248 |
| نوع البيانات | تسلسل الحمض النووي الريبوزي أحادي الخلية القائم على القطيرات من 10x Genomics؛ التنميط النسخي عالي الإنتاجية |
| عينات بشرية | ثلاث عينات من الشريان الرئوي لمرضى ارتفاع الضغط الشرياني الرئوي (PAH) وثلاث عينات من الشريان الرئوي لمتبرعين أصحاء |
| مصدر النسيج | أنسجة الشريان الرئوي خارج الجسم، والتي تعكس بشكل أساسي البيئة الخلوية لجدار الأوعية الرئوية وعملية إعادة تشكيل الأوعية الدموية |
| الغرض التحليلي الرئيسي | تحديد التموضع حسب نوع الخلية، والتحول المظهري لخلايا العضلات الملساء، والتواصل بين الخلايا المناعية والخلايا التركيبية، والتحقق من الاتساق الآلي للجينات المرشحة |
الجدول 1: معلومات أساسية لمجموعة بيانات التحقق من الخلية الواحدة GSE210248. يلخص الجدول رقم الوصول إلى مجموعة البيانات، ومنصة التسلسل، ومصدر النسيج، وتكوين العينة، والغرض التحليلي لتحليل التحقق من الشريان الرئوي في الخلية الواحدة.
8. التحقق من التعبير الجيني بواسطة qRT-PCR
تضمن التحقق باستخدام qRT-PCR عدد 20 عينة نسيج رئوي مستقلة بيولوجياً مصابة بـ PAH من مرضى يعانون من PH/PAH، و20 عينة نسيج رئوي ضابطة مستقلة بيولوجياً. تم استخلاص RNA الكلي باستخدام Total RNA Extraction Kit. وقُيم تركيز RNA ونقاوته باستخدام مقياس الطيف الضوئي (spectrophotometer)، كما تم تقييم سلامة RNA عن طريق الفصل الكهربائي لهلام الأغاروز. وتم تضمين عينات RNA التي تتراوح قيم A260/280 الخاصة بها بين 1.8 و2.1 والتي لم تظهر بها علامات تحلل مرئية فقط.
تم نسخ كميات متساوية من RNA عكسياً إلى DNA مكمل باستخدام Solarbio Universal RT-PCR Kit (AMV; رقم الكتالوج RP1200). أُجري تفاعل البوليميراز المتسلسل الكمي (qPCR) لكل من CXCL10 وJUN وIFIH1 وMX1 وTLR7 باستخدام SYBR Green PCR Master Mix على نظام Real-Time PCR. تم تحليل كل عينة بيولوجية في ثلاث مكررات تقنية، جنباً إلى جنب مع ضوابط خالية من القالب وضوابط خالية من النسخ العكسي. استُخدم متوسط قيمة Ct للمكررات التقنية الثلاثة في التحليلات اللاحقة؛ ولم تُعامل المكررات التقنية كملاحظات مستقلة. استُخدمت بادئات تغطي الوصلات بين الإكسونات وتنتج قطع تضخيم تتراوح ما بين 80-200 bp (الجدول 2). تم التحقق من نوعية البادئات باستخدام NCBI Primer-BLAST وتحليل منحنى الانصهار22.
استُخدم جين β-actin (ACTB) كجين مرجعي داخلي لمعايرة مستويات تعبير الجينات المستهدفة. وحُسب التعبير النسبي باستخدام طريقة 2-ΔΔCt23. كما استُخدمت اختبارات Mann-Whitney U ثنائية الجانب لإجراء المقارنات بين المجموعات بناءً على توزيع البيانات، وطُبق تصحيح معدل الاكتشاف الخاطئ لـ Benjamini-Hochberg على الجينات الخمسة. وأُنشئت منحنيات ROC للجينات المنفردة مع فواصل ثقة DeLong بنسبة 95%، واختيرت نقاط القطع المثلى باستخدام مؤشر Youden. تم في البداية ضبط نموذج الانحدار اللوجستي المكون من خمسة جينات وتقييمه على نفس العينات البيولوجية البالغ عددها 40 عينة؛ وبناءً عليه، عُرِّف هذا التقدير على أنه الأداء الظاهري داخل العينة. ولتقييم احتمالية وجود فرط توافق، أُجريت 100 تكرار للتحقق المتقاطع خماسي الطيات الطبقي باستخدام نموذج انحدار لوجستي منتظم من نوع L2، ثم حُسب أداء ROC المجمع خارج الطيات.
| جين | رقم وصول RefSeq | البادئ الأمامي (5'′–3′) | بادئ عكسي (5′–3′) | حجم الناتج (زوج قاعدي) | درجة حرارة الانصهار (Tm)°C) | ممتد عبر الإكسونات |
| CXCL10 | NM_001565.4 | GTCAAGCCAT AATTGTTC | ATAGTGCCAG GGTAGAGT | 141 | 46.1 | نعم |
| يون | NM_002228.4 | ACAAGTGGCA GAGTCCCG | CGCCCAAGTT CAACAACC | 152 | 54.5 | نعم |
| IFIH1 | NM_022168 | GCACAGAGCG GTAGACCCT | GCCCTGAAGC ACGAGATG | 182 | 54.7 | نعم |
| MX1 | NM_002462.5 | TTAGCCGTGG TGATTTAGC | CAAGGTGGAG CGATTCTG | 156 | 52.3 | نعم |
| مستقبل TLR7 | NM_016562.4 | ATTGCCCTCGT TGTTATA | TTCCTGGAGTT TGTTGAT | 179 | 48.1 | نعم |
| ACTB | NM_001101.3 | CTCACCATGGAT GATGATATCGC | AGGAATCCTTCT GACCCATGC | 194 | 56.2 | نعم |
الجدول 2: تسلسلات البادئات المستخدمة في تفاعل البوليميراز المتسلسل النسخي العكسي الكمي. يدرج الجدول الجينات المستهدفة، وأرقام تتبع RefSeq، وتسلسلات البادئات الأمامية والعكسية، وأحجام النواتج، ودرجات حرارة الانصهار، وحالة تغطية الإكسونات للبادئات المستخدمة في qRT-PCR.
9. فحص المركبات المرشحة والرسو الجزيئي
تم إرسال تواقيع الجينات الأساسية المرتفعة والمنخفضة التعبير إلى قاعدة بيانات Connectivity Map لتحديد الجزيئات الصغيرة المتوقع أن تعكس ملف التعبير الجيني المرتبط بفرط ضغط الدم الرئوي (PH)7. وقد تم ترتيب المرشحين وفقاً لدرجة Logit واحتمالية التنبؤ.
تم الحصول على البنية ثلاثية الأبعاد لـ BRD-K91900765/VX-745 من PubChem تحت معرف CID 303852524. وقد تم جمع المعلومات الصيدلانية المتعلقة بالمركب من قواعد بيانات الأدوية العامة، وحُسبت الواصفات البنيوية باستخدام DrugBank وSwissADME25,26. كما تم الحصول على بنيات البروتين من RCSB Protein Data Bank باستخدام معرفات PDB التالية: CXCL10، 1LV9؛ وJUN، 1JUN؛ وIFIH1، 3B6E؛ وMX1، 5GTM؛ وTLR7، 7CYN؛ وMAPK14/p38α، 1OUK27. أُجري الكشف عن التجويفات العمياء والرسو الجزيئي باستخدام CB-Dock2 v2.0 مع محرك تسجيل النقاط AutoDock Vina v1.2.028,29. رُفعت ملفات البروتين والرابط إلى CB-Dock2، وكُشفت التجويفات المرشحة تلقائياً، وأُجري الرسو ضمن الصناديق المحددة للتجويفات والتي أنشأها الخادم. وبالنسبة لكل بروتين، تم تسجيل معرف التجويف، ودرجة Vina، وحجم التجويف، ومركز صندوق الرسو، وأبعاد صندوق الرسو، وملف معقد البروتين-الرابط. تم اختيار الوضعية ذات درجة Vina الأكثر سلبية كأفضل تشكيل متوقع. أُدرج MAPK14/p38α كهدف صيدلاني معروف وبروتين رسو مرجعي إيجابي لـ VX-745. أما الرسو ضد CXCL10 وJUN وIFIH1 وMX1 وTLR7 فكان استكشافياً ولم يتم تفسيره كدليل على استهداف صيدلاني مباشر أو ارتباط أو تثبيط أو فعالية.
10. التحليل الإحصائي والتحكم في قابلية التكرار
أُجريت جميع التحليلات الإحصائية باستخدام برنامج R ما لم يُذكر خلاف ذلك. واعتُبرت قيم P ثنائية الطرف التي كانت < 0.05 دالة إحصائياً. كما طُبق تصحيح الاختبارات المتعددة على تحليلات التعبير التفاضلي، والإثراء، والتحقق الخارجي، وتحليلات qRT-PCR كما هو محدد أعلاه. واستُخدم التحقق المتقاطع لتقييم استقرار نماذج التعلم الآلي ونماذج qRT-PCR المدمجة.
النتائج
المعالجة المسبقة لبيانات الترانسكريبتوم العامة وتحديد الجينات ذات التعبير التفاضلي
أدى دمج وتصحيح ComBat للمجموعات GSE22356 وGSE33463 وGSE48149 إلى تقليل الفروق المنهجية بين مجموعات البيانات. وأظهرت المخططات الصندوقية أن توزيعات التعبير للعينات أصبحت أكثر اتساقاً بعد التصحيح. كما أشار تحليل المكونات الرئيسية إلى أن العينات تجمعت بشكل أساسي وفقاً لمصدر مجموعة البيانات قبل التصحيح، ولكنها أصبحت أكثر تداخلاً بعد التصحيح، مما يشير إلى خفض فعال لتأثير الدفعة (الشكل 1).
باستخدام عتبات لتغير طي مطلق (absolute log2 fold change) >0.585 وقيمة P معدلة < 0.05، تم تحديد 78 جينًا متباين التعبير، بما في ذلك 44 جينًا زاد تعبيرها و34 جينًا انخفض تعبيرها (الشكل 2A). وأظهرت الخريطة الحرارية أن الجينات المرتبطة بالإنترفيرون، بما في ذلك XAF1 وMX1 وIFI44L وEPSTI1 وPARP9 وIFIH1 وCXCL10 وGBP1 وSTAT1 وSAMHD1 وTNFSF10 وTLR7، كانت بشكل عام زائدة التعبير في العينات المرتبطة بـ PH. وفي المقابل، كانت الجينات المرتبطة بكرات الدم الحمراء، بما في ذلك HBG1 وHBD وALAS2 وCA1 وSLC4A1، تميل إلى أن تكون منخفضة التعبير (الشكل 2B).
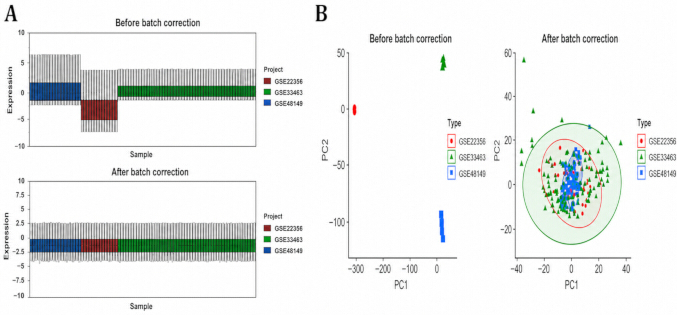
الشكل 1: تصحيح تأثير الدفعة. (A) مخططات صندوقية لمصفوفة التعبير المدمجة قبل وبعد تصحيح ComBat. (B) مخططات تحليل المكونات الرئيسية (PCA) التي توضح توزيعات العينات قبل وبعد تصحيح تأثير الدفعة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
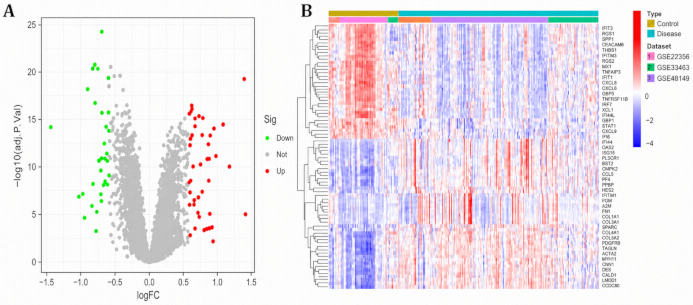
الشكل 2: الجينات ذات التعبير التفاضلي. (A) مخطط بركاني يوضح الجينات ذات التعبير المرتفع والمنخفض في العينات المرتبطة بـ PH. (B) خريطة حرارية توضح الجينات ذات التعبير التفاضلي بين مجموعتي التحكم والمرض. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
بناء شبكة التعبير الجيني المشترك المرجحة والإثراء الوظيفي
أظهر تجميع العينات تجميعاً عاماً مستقراً دون وجود قيم شاذة واضحة (الشكل 3A). اقترب مؤشر ملاءمة الطوبولوجيا الخالية من المقياس من 0.8 عند قوة 9، وتم اختيار β = 9 لبناء الشبكة (الشكل 3B). وأدى تجميع الجينات وتحديد الوحدات الديناميكية إلى ظهور وحدات تعبير مشترك متعددة (الشكل 3C). وأظهرت الوحدة الزرقاء أقوى ارتباط بحالة PH (r = 0.55, P = 1 × 10⁻¹⁹)، بينما أظهرت الوحدتان الفيروزية والرمادية أيضاً ارتباطات مع PH (الشكل 3D).
كانت الجينات التوافقية التي تم الحصول عليها من خلال تقاطع جينات وحدة تحليل شبكة التعبير الجيني المشترك الموزونة الرئيسية مع الجينات ذات التعبير المتباين مثرية في الدفاع المناعي المضاد للفيروسات، وتنظيم NF-κB و JAK-STAT، والاستجابات للعوامل الالتهابية، وارتباط مستقبلات السيتوكينات والكيموكينات، والتنظيم النسخي (الشكل 4A). وحدد تحليل الإثراء الخاص بموسوعة كيوتو للجينات والجينومات (Kyoto Encyclopedia of Genes and Genomes) تفاعل السيتوكين-مستقبل السيتوكين، وإشارات الكيموكين، وإشارات مستقبلات NOD-like، وإشارات مستقبلات Toll-like، وإشارات عامل نخر الورم، وإشارات إنترلوكين-17 (الشكل 4B)، مما يدعم الخلل في التنظيم المناعي الالتهابي كأساس جزيئي لإعادة تشكيل الأوعية الدموية الرئوية.
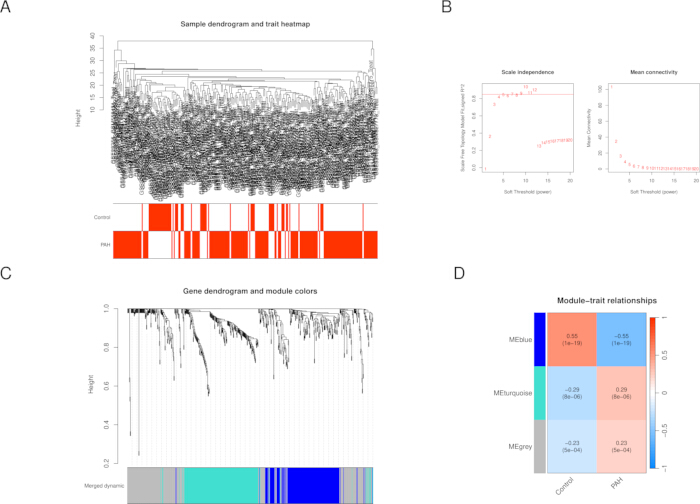
الشكل 3: تحليل شبكة التعبير الجيني المشترك الموزونة. (A) شجرة تجميع العينات والخريطة الحرارية للسمات. (B) مخطط اختيار العتبة اللينة. (C) الشجرة التفرعية للجينات وألوان الوحدات. (D) الخريطة الحرارية للعلاقة بين الوحدة والسمة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
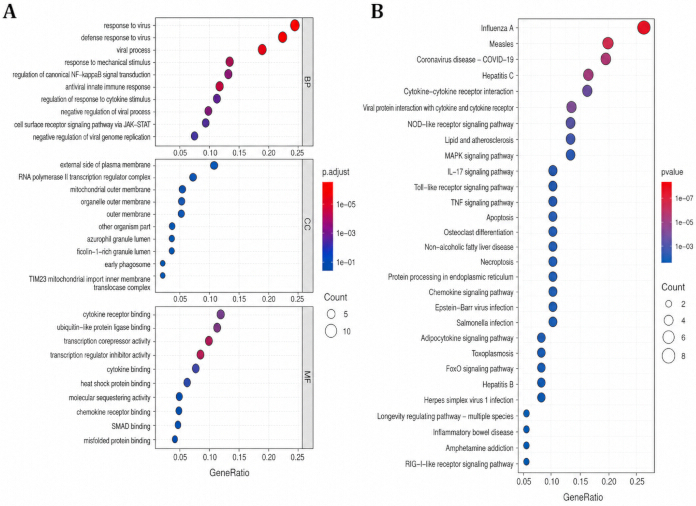
الشكل 4: تحليل الإثراء الوظيفي. (A) نتائج إثراء الوجود الجيني (Gene Ontology) للجينات المتفق عليها. (B) نتائج إثراء مسارات موسوعة كيوتو للجينات والجينومات (KEGG) للجينات المتفق عليها. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
شبكة التفاعل بين البروتين والبروتين وفحص الجينات المحورية
كشفت شبكة تفاعلات البروتين-بروتين STRING التي تم بناؤها من الجينات المتفق عليها عن شبكة مناعية التهابية مترابطة (الشكل 5A). وأظهر تصنيف CytoHubba القائم على الدرجة أن جينات FN1 وCD44 وJUN وTGFB1 وCXCL8 وBCL2 تمتلك اتصالاً عالياً (الشكل 5B). وقد تشارك هذه الجينات المحورية في إشارات الالتهاب، والتصاق الخلايا، وإعادة تشكيل المصفوفة خارج الخلية، وإعادة التشكيل الهيكلي للأوعية الدموية الرئوية.
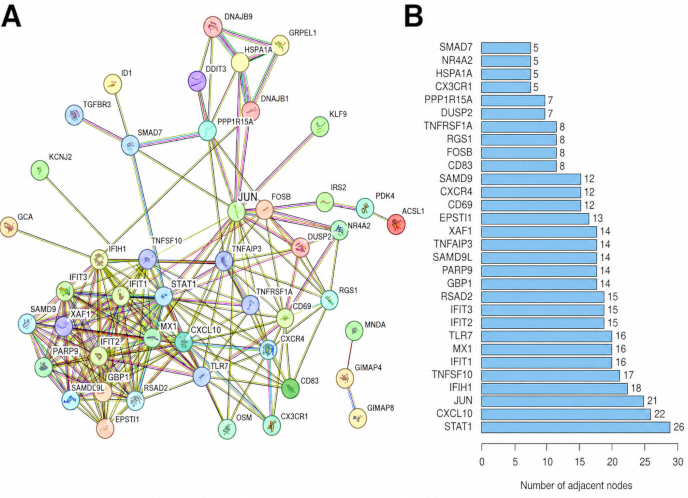
الشكل 5: شبكة تفاعل البروتين-بروتين والجينات المركزية. (A) شبكة تفاعل البروتين-بروتين STRING للجينات المتفق عليها. (B) الجينات المركزية المصنفة حسب الدرجة والتي تم تحديدها باستخدام CytoHubba. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
اختيار الميزات عبر تعلم الآلة والأداء التشخيصي
حدد تحليل الانحدار باستخدام عامل الاختيار والتقليص المطلق الأصغر (LASSO) ستة جينات مرشحة ذات معاملات غير صفرية بعد عملية التحقق المتقاطع (الشكل 6A، B). واحتفظ تحليل آلة ناقلات الدعم مع حذف الميزات المتكرر (SVM-RFE) بثمانية جينات، وأعطى دقة تحقق متقاطع بلغت 0.883 ومعدل خطأ قدره 0.117 (الشكل 7A). واستقر خطأ خارج الحقيبة (OOB) في الغابة العشوائية عندما كان عدد الأشجار ≥100، وصُنفت جينات IFIH1 وJUN وTLR7 ضمن أهم الجينات وفقاً لدرجة الأهمية (الشكل 7B).
حدد تقاطع نتائج مشغل التقلص والاختيار الأدنى المطلق، وإزالة الميزات المتكررة لآلة ناقلات الدعم، والغابة العشوائية خمسة جينات أساسية وهي: CXCL10 وJUN وIFIH1 وMX1 وTLR7 (الشكل 8A). وأظهر تحليل منحنى خصائص التشغيل للمستقبل للجين الواحد تمييزاً تشخيصياً متوسطاً إلى جيد، حيث بلغت قيم المساحة تحت المنحنى 0.842 لـ IFIH1 و0.833 لـ JUN و0.827 لـ TLR7 و0.814 لـ CXCL10 و0.759 لـ MX1 (الشكل 8B).
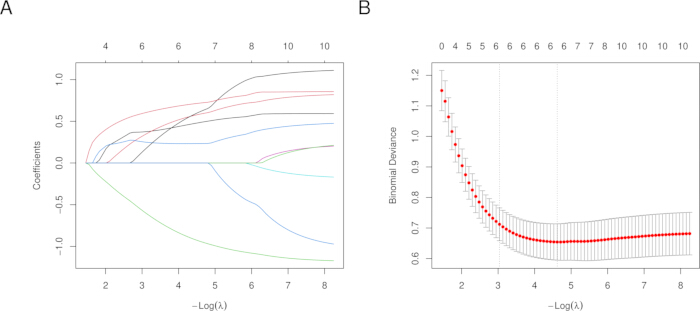
الشكل 6: تحليل انحدار مشغل الاختيار والتقلص المطلق الأدنى (Lasso). (A) مسار المعاملات الناتج عن انحدار مشغل الاختيار والتقلص المطلق الأدنى. (B) مخطط خطأ التحقق المتبادل. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
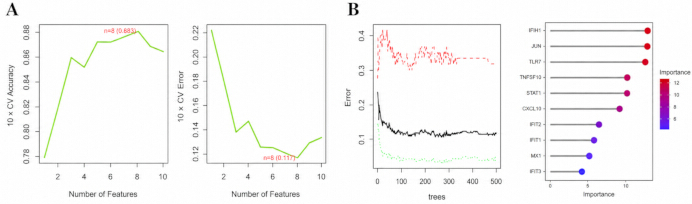
الشكل 7: تحليلات آلة ناقلات الدعم-الإزالة المتكررة للميزات والغابة العشوائية. (A) مخطط اختيار الميزات باستخدام آلة ناقلات الدعم-الإزالة المتكررة للميزات. (B) نموذج الغابة العشوائية وتصنيف أهمية الجينات. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
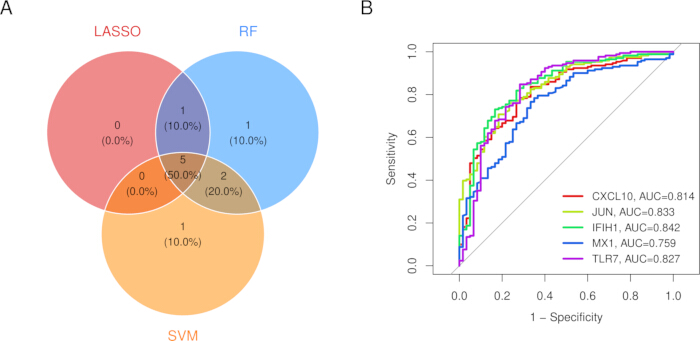
الشكل 8: ملخص تعلم الآلة. (A) مخطط فين يوضح التقاطع بين خوارزميات اختيار الميزات الثلاث. (B) منحنيات خصائص تشغيل المستقبل للخمسة جينات الأساسية. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
التحقق الخارجي في GSE117261
استُخدمت مجموعة GSE117261 كعينة تحقق مستقلة من أنسجة الرئة، ولم تُدرج في فحص التعبير التفاضلي، أو بناء شبكة التعبير الجيني المشترك الموزونة، أو اختيار الميزات عبر التعلم الآلي (الجدول 3). وأظهرت نتائج التحقق المكتملة تكراراً متبايناً عبر الجينات الخمسة (الجدول 4). فقد ارتفع مستوى CXCL10 (log₂ fold change = 0.677; P = 0.0410; FDR = 0.144) وحقق قيمة AUC بلغت 0.639 (95% CI, 0.491–0.786)، مع نقطة قطع بلغت 6.245، وحساسية 0.724، ونوعية 0.600. كما ارتفع مستوى JUN (log₂ fold change = 0.463; P = 0.00248; FDR = 0.0194) وحقق قيمة AUC بلغت 0.714 (95% CI, 0.593–0.835)، مع نقطة قطع بلغت 8.708، وحساسية 0.707، ونوعية 0.720.
لم تستوفِ الجينات IFIH1 (log2 fold change = 0.107; P = 0.371; FDR = 0.591; AUC = 0.543, 95% CI, 0.398–0.687)، و MX1 (log2 fold change = 0.109; P = 0.488; FDR = 0.690; AUC = 0.475, 95% CI, 0.337–0.614)، و TLR7 (log2 fold change = -0.050; P = 0.543; FDR = 0.733; AUC = 0.546, 95% CI, 0.414–0.679) معايير الدعم الخارجي المحددة مسبقاً. كما أظهر TLR7 اتجاهاً معاكساً لنتيجة qRT-PCR. وأعطى النموذج الاستكشافي المكون من خمسة جينات، والذي تم ملاءمته وتقييمه ضمن GSE117261، قيمة AUC ظاهرة بلغت 0.740، بينما أعطى التحقق المتقاطع المتداخل المتكرر قيمة AUC بلغت 0.656. وبناءً على ذلك، حصل JUN على أقوى دعم مستقل، وأظهر CXCL10 أدلة محدودة متسقة من حيث الاتجاه، بينما كان تكرار IFIH1 و MX1 و TLR7 ضعيفاً أو غير متسق.
| عنصر | الوصف |
| رقم الوصول إلى مجموعة البيانات | GSE117261 |
| مصدر البيانات | مستودع التعبير الجيني (GEO) |
| نوع العينة | بيانات المصفوفات الدقيقة للنسخ في أنسجة الرئة البشرية |
| حجم العينة | 58 عينة من الهيدروكربونات العطرية متعددة الحلقات (PAH) و25 عينة ضابطة من متبرعين غير مؤهلين |
| منصة | GPL6244 / مصفوفة Affymetrix Human Gene 1.0 ST Array |
| هدف التحقق من الصلاحية | اختلافات التعبير، وتحليل منحنى خصائص التشغيل للمستقبل (ROC) لكل جين على حدة، ونمذجة ROC الاستكشافية المدمجة لخمسة جينات لكل من CXCL10 وJUN وIFIH1 وMX1 وTLR7 |
| الدور في هذه الدراسة | مجموعة بيانات تحقق خارجية مستقلة؛ غير مدرجة في عمليات التدريب الأصلية، أو تحليل شبكة التعبير الجيني المشترك الموزون (WGCNA)، أو تحليلات اختيار الميزات |
الجدول 3: معلومات أساسية حول مجموعة بيانات التحقق الخارجي المستقلة GSE117261. يلخص الجدول مصدر مجموعة البيانات، ونوع العينة، وحجم العينة، والمنصة المستخدمة، وأهداف التحقق، ودور GSE117261 في الدراسة.
| الجين/النموذج | PAH n | Control n | log2 fold change | القيمة الاحتمالية P value | معدل الاكتشاف الخاطئ FDR | المساحة تحت المنحنى AUC | AUC 95% CI | نقطة قطع يودن Youden cutoff | الحساسية | الخصوصية |
| CXCL10 | 58 | 25 | 0.677 | 0.041 | 0.144 | 0.639 | 0.491–0.786 | 6.245 | 0.724 | 0.6 |
| JUN | 58 | 25 | 0.463 | 0.00248 | 0.019 | 0.714 | 0.593–0.835 | 8.708 | 0.707 | 0.72 |
| IFIH1 | 58 | 25 | 0.107 | 0.371 | 0.591 | 0.543 | 0.398–0.687 | 5.3 | 0.759 | 0.44 |
| MX1 | 58 | 25 | 0.109 | 0.488 | 0.69 | 0.475 | 0.337–0.614 | 6.833 | 0.724 | 0.4 |
| TLR7 | 58 | 25 | -0.05 | 0.543 | 0.733 | 0.546 | 0.414–0.679 | 4.065 | 0.138 | 1 |
| نموذج الجينات الخمسة (الظاهري/داخل العينة) | 58 | 25 | / | / | / | 0.74 | 0.621–0.859 | 0.613 | 0.845 | 0.6 |
| نموذج الجينات الخمسة (التحقق المتقاطع المتداخل المتكرر) | 58 | 25 | / | / | / | 0.656 | 0.517–0.795 | 0.655 | 0.845 | 0.52 |
الجدول 4: نتائج الفرق الفعلي في التعبير والتحقق باستخدام منحنى خصائص تشغيل المستقبل (ROC) للمجموعة GSE117261. يوضح الجدول أحجام عينات PAH والعينات الضابطة، وتغيرات نسبة الطي log₂، وقيم P، والقيم المعدلة وفقاً لمعدل الاكتشاف الخاطئ، والمساحات تحت المنحنى (AUCs)، وفترات الثقة 95%، ونقاط القطع وفق مؤشر يودن، والحساسيات، والخصوصيات، والتفسيرات للخمسة جينات والنماذج المشتركة الاستكشافية.
التحقق من صحة تفاعل البوليميراز المتسلسل النسخي العكسي الكمي
شمل التحقق باستخدام تفاعل البوليميراز المتسلسل الكمي بالنسخ العكسي (Quantitative reverse transcription PCR) ٢٠ عينة أنسجة رئوية مستقلة بيولوجياً مصابة بـ PAH و٢٠ عينة ضابطة مستقلة بيولوجياً، مع حساب متوسط ثلاث مكررات تقنية لكل عينة بيولوجية. وقد أظهرت الجينات CXCL10 وJUN وIFIH1 وMX1 وTLR7 زيادة معنوية في التعبير الجيني في حالات PAH (الجدول 5؛ الشكل 9A). وكانت قيم متوسط التعبير النسبي تقريباً 3.470 لـ CXCL10، و2.560 لـ JUN، و2.760 لـ IFIH1، و2.650 لـ MX1، و2.580 لـ TLR7. وكانت قيم P/FDR المقابلة هي 1.43 × 10⁻7/7.15 × 10⁻7، و4.17 × 10⁻5/4.17 × 10⁻5، و1.10 × 10⁻5/1.38 × 10⁻5، و1.58 × 10⁻6/2.63 × 10⁻6، و1.37 × 10⁻6/2.63 × 10⁻6، على التوالي.
أظهر تحليل ROC للجين الواحد بناءً على تعبير qRT-PCR قيم AUC بلغت 0.988 لـ CXCL10 (فاصل ثقة 95%، 0.961–1.000)، و0.880 لـ JUN (فاصل ثقة 95%، 0.758–1.000)، و0.908 لـ IFIH1 (فاصل ثقة 95%، 0.820–0.995)، و0.945 لـ MX1 (فاصل ثقة 95%، 0.874–1.000)، و0.948 لـ TLR7 (فاصل ثقة 95%، 0.886–1.000) (الشكل 9B; الجدول 5). وحقق نموذج الانحدار اللوجستي المكون من خمسة جينات قيمة AUC ظاهرة بلغت 1.000 (فاصل ثقة DeLong 95%: 1.000–1.000)، مع حساسية ونوعية بلغت 1.000 (الشكل 9C). وتم تصور اتساق اتجاه التعبير بين التحقق بواسطة qRT-PCR وGSE117261 باستخدام خريطة حرارية (الشكل 9D). ونظرًا لاستخدام نفس الـ 40 عينة في كل من الملاءمة والتقييم، فقد عكس ذلك الأداء الظاهري داخل العينة. وفي 100 تكرار من التحقق المتقاطع خماسي الطيات الطبقي باستخدام نموذج انحدار لوجستي منتظم من نوع L2، ظلت قيمة AUC المجمعة خارج الطية 1.000 (فاصل ثقة 95%، 1.000–1.000)، وأعطى كل تكرار قيمة AUC بلغت 1.000. ورغم هذا الاستقرار الداخلي، كانت المجموعة صغيرة ولا يزال التحقق الاستشرافي المستقل ضروريًا. وأظهرت المقارنة الاتجاهية مع GSE117261 زيادات متوافقة لكل من CXCL10 وJUN وIFIH1 وMX1، ولكن اتجاهًا غير متوافق لـ TLR7 (الشكل 9D).
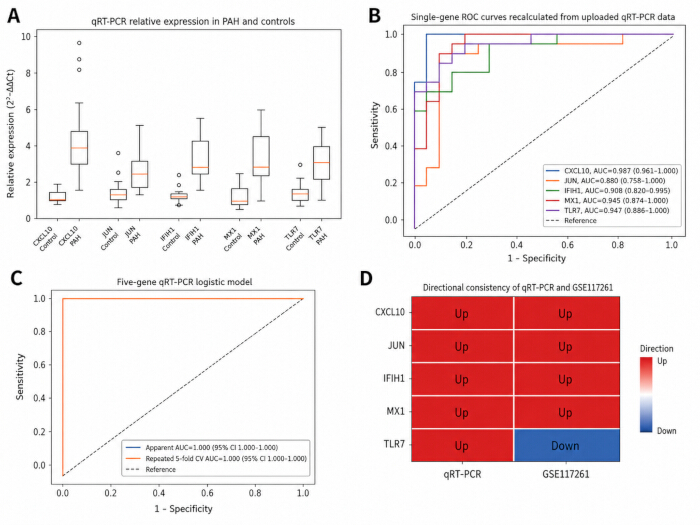
الشكل 9: التحقق بواسطة تفاعل البوليميراز المتسلسل الكمي مع النسخ العكسي. (A) مخططات صندوقية توضح التعبير النسبي لـ CXCL10 وJUN وIFIH1 وMX1 وTLR7 في 20 عينة نسيج رئوي مستقلة بيولوجياً مصابة بـ PAH و20 عينة تحكم مستقلة بيولوجياً. تم قياس كل عينة بيولوجية في ثلاث مكررات تقنية، واستُخدم متوسط قيمة Ct للتحليل. وفي كل مخطط صندوقي، يمثل الخط المركزي الوسيط، ويمثل الصندوق المدى الربيعي، وتمتد الشعيرات إلى 1.5 مرة من المدى الربيعي، وتمثل النقاط الفردية خارج الشعيرات القيم المتطرفة. (B) منحنيات ROC لجين واحد بناءً على قيم تعبير qRT-PCR؛ وتظهر قيم AUC وفترات ثقة DeLong بنسبة 95%. (C) منحنيات ROC لنموذج الانحدار اللوجستي المكون من خمسة جينات، مما يوضح كلاً من الأداء الظاهري/داخل العينة والأداء المجمع خارج الطية من 100 تحليل متكرر للتحقق المتقاطع الطبقي خماسي الطيات. (D) خريطة حرارية توضح اتساق اتجاه التعبير بين qRT-PCR وGSE117261؛ حيث زاد CXCL10 وJUN وIFIH1 وMX1 بشكل متوافق، بينما كان TLR7 غير متوافق. يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
| الجين/النموذج | ارتفاع ضغط الدم الشرياني الرئوي | مجموعة الضبط ن | المجموعة الضابطة 2^-ΔΔCt، المتوسط ± الانحراف المعياري | PAH 2^-ΔΔCt، المتوسط ± الانحراف المعياري | الاتجاه | القيمة الاحتمالية (P value) | معدل الاكتشاف الخاطئ | المساحة تحت المنحنى | المساحة تحت المنحنى (AUC) بفاصل ثقة 95% (CI) | نقطة قطع يودن | حساسية- نشاط | تخصيـ مدينة | نوع التحقق من الصلاحية | ||||
| CXCL10 | 20 | 20 | 1.099 ± 0.502 | 3.470 ± 1.043 | زيادة التنظيم | 1.43E-07 | 7.15E-07 | 0.987 | 0.961–1.000 | 2.028 | 1 | 0.95 | تحليل qRT-PCR للجين الواحد | ||||
| JUN | 20 | 20 | 1.158 ± 0.738 | 2.560 ± 1.609 | تنظيم تصاعدي | 4.17E-05 | 4.17E-05 | 0.88 | 0.758–1.000 | 1.423 | 0.85 | 0.9 | تحليل qRT-PCR لجين واحد | ||||
| IFIH1 | 20 | 20 | 1.091 ± 0.440 | 2.760 ± 1.398 | مُنظَّم بالزيادة | 1.10E-05 | 1.38E-05 | 0.908 | 0.820–0.995 | 1.579 | 0.8 | 0.85 | تحليل تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي لجين واحد (Single-gene qRT-PCR analysis) | ||||
| MX1 | 20 | 20 | 1.132 ± 0.582 | 2.650 ± 1.085 | مُنظم تصاعدياً | 1.58E-06 | 2.63E-06 | 0.945 | 0.874–1.000 | 1.779 | 0.9 | 0.9 | تحليل qRT-PCR لجين واحد | ||||
| مستقبل TLR7 | 20 | 20 | 1.080 ± 0.444 | 2.580 ± 1.284 | مُحفَّز (زيادة التعبير) | 1.37E-06 | 2.63E-06 | 0.947 | 0.886–1.000 | 1.764 | 0.85 | 0.9 | تحليل qRT-PCR لجين واحد | ||||
| نموذج الجينات الخمسة (الظاهري/داخل العينة) | 20 | 20 | غير قابل للتطـ... كابل | غير قابل للتطبيق كابل | غير قابل للتطبيق | / | / | 1 | 1.000–1.000 | 0.998 | 1 | 1 | نفس العينات البيولوجية الـ 40 المستخدمة في ملاءمة النموذج وتقييمه | ||||
| نموذج الجينات الخمسة (تحقق تبادلي خماسي مكرر 100 مرة) | 20 | 20 | غير قابل للتطبيق كابل | غير قابل للتطبيق كابل | غير قابل للتطبيق | / | / | 1 | 1.000–1.000 | 0.716 | 1 | 1 | التحقق المتقاطع الداخلي باستخدام الانحدار اللوجستي المنتظم L2 | ||||
الجدول 5: نتائج التعبير الجيني الكامل بواسطة qRT-PCR ونتائج ROC لكل من CXCL10 وJUN وIFIH1 وMX1 وTLR7، بما في ذلك تحليلات النموذج المشترك المكون من خمسة جينات. يوضح الجدول أحجام عينات PAH وعينات الضبط، وقيم التعبير النسبي، واتجاهات التعبير، وقيم P، والقيم المعدلة وفقاً لمعدل الاكتشاف الخاطئ، والمساحات تحت المنحنى (AUCs)، وفترات الثقة 95%، ونقاط القطع وفقاً لمؤشر يودن، والحساسيات، والخصوصيات، وأنواع التحقق للجينات الفردية والنماذج المشتركة.
التحقق من النسخ أحادي الخلية في GSE210248
قدمت مجموعة البيانات GSE210248 دعماً ميكانيكياً على مستوى الخلايا من خلال إظهار أن إعادة تشكيل الشرايين الرئوية في حالات PAH كانت مصحوبة بتغير في التواصل بين الخلايا المناعية والخلايا الهيكلية الوعائية. وتتفق هذه الملاحظة مع الإثراء في النسخ الشامل (bulk transcriptomic enrichment) للاستجابات الالتهابية، وإشارات الكيموكين، وإشارات المستقبلات الشبيهة بـ Toll، وإشارات عامل نخر الورم.
أشارت الأدلة المستمدة من تحليل الخلية الواحدة إلى أن شبكة إشارات الشريان الرئوي في حالة PAH قد تحولت نحو الخلايا الهيكلية، بما في ذلك الخلايا العضلية الملساء والخلايا الليفية. وأظهرت الخلايا العضلية الملساء حالات متعددة، بما في ذلك الحالة الشبيهة بالخلايا الحوطية/المستشعرة للأكسجين، والحالة الانقباضية، والحالة التخليقية، والحالة الشبيهة بالخلايا الليفية. وتدعم هذه النتائج نموذجاً للمرض يؤدي فيه التنشيط المناعي الالتهابي وإعادة تشكيل الخلايا الهيكلية الوعائية بشكل مشترك إلى دفع تطور PH/PAH.
فحص المركبات المرشحة والالتحام الجزيئي
حدد فحص خريطة الاتصال (Connectivity Map) المركب BRD-K91900765 كأعلى مركب مرشح تصنيفاً من بين أفضل 10 نتائج، حيث بلغت درجة Logit الخاصة به 10.13 مع احتمالية متوقعة قدرها 0.085 (الشكل 10). وأظهر تقييم المركبات أن BRD-K91900765 يتطابق مع VX-745/neflamapimod، وهو مثبط انتقائي لـ p38α/MAPK14 يحمل معرف مركب PubChem رقم 3038525 وكتلة جزيئية تبلغ 436.27 g/mol (الجدول 6).
أظهرت عملية الإرساء الاستكشافية لمركب BRD-K91900765/VX-745 مع البروتينات الخمسة المرتبطة بالمؤشرات الحيوية أعلى درجات Vina بلغت -7.5 kcal/mol لبروتين CXCL10، و-7.6 kcal/mol لبروتين JUN، و-7.5 kcal/mol لبروتين IFIH1، و-8.7 kcal/mol لبروتين MX1، و-8.1 kcal/mol لبروتين TLR7 (الجداول 7–11؛ الشكل 11A–E). أشارت هذه النتائج إلى توافق هيكلي متوقع فقط، ولم تثبت أن البروتينات الخمسة تمثل أهدافاً دوائية مباشرة. كما اقترحت التنبؤات الأولية للامتصاص والتوزيع والتمثيل الغذائي والإخراج والسمية (ADMET) أن المركب يتمتع بعدة خصائص شبيهة بالأدوية، على الرغم من أن قيمة cLogP المحسوبة المرتفعة نسبياً تتطلب مزيداً من التقييم (الجدول 12). تضمنت الدراسة تحليل مرجعي إيجابي عبر الإرساء مقابل الهدف المعروف لمركب VX-745، وهو MAPK14/p38α (PDB ID: 1OUK). وقد أعطى تجويف MAPK14 الأعلى، C1، درجة Vina بلغت -7.9 kcal/mol، وحجم تجويف قدره 3560 Å3، ومركز صندوق إرساء عند (2, 22, 34)، وأبعاد بلغت (22, 31, 31) (الجدول 13؛ الشكل 11F).
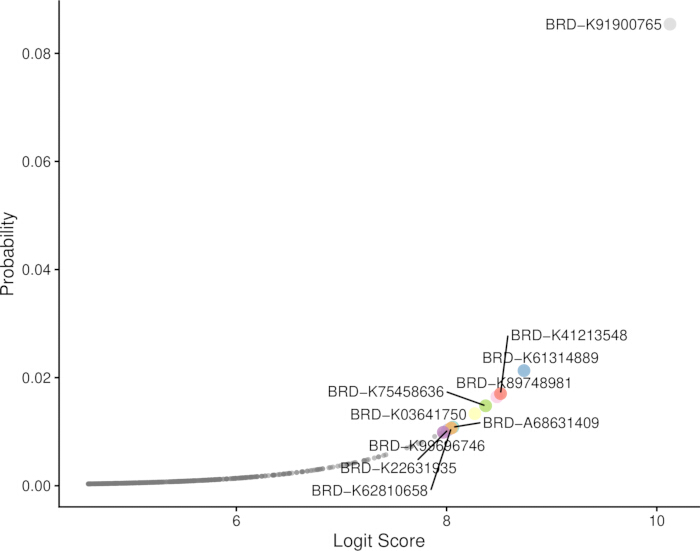
الشكل 10: ترتيب المركبات المرشحة من خريطة الاتصال (Connectivity Map). ترتيب المركبات المرشحة التي تم تحديدها من خلال فحص خريطة الاتصال. كان المركب BRD-K91900765 هو الأعلى ترتيباً، حيث بلغت درجة Logit الخاصة به 10.13 واحتمالية متوقعة قدرها 0.085. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
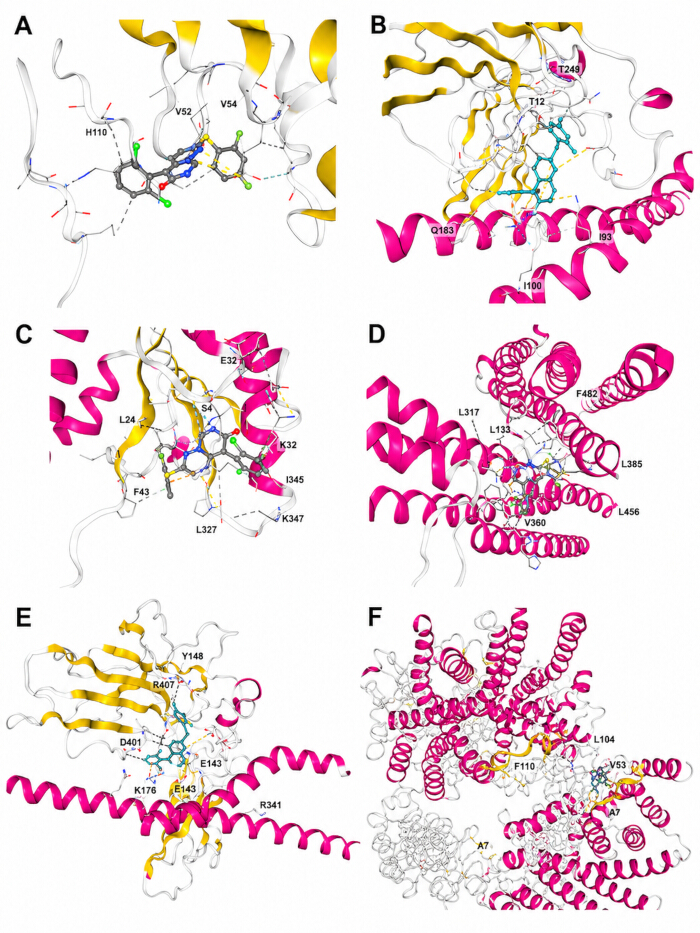
الشكل 11: مخططات الإرساء الجزيئي ثلاثية الأبعاد لـ BRD-K91900765/VX-745. (A) إرساء استكشافي مع CXCL10. (B) إرساء استكشافي مع JUN. (C) إرساء استكشافي مع IFIH1. (D) إرساء استكشافي مع MX1. (E) إرساء استكشافي مع TLR7. (F) إرساء مرجعي إيجابي مع الهدف الفارماكولوجي المعتمد MAPK14/p38α (PDB ID: 1OUK). تشير اللوحات A–E إلى التوافق الهيكلي المتوقع ولا تثبت استهدافاً فارماكولوجياً مباشراً. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| البند | الوصف |
| معرف CMap/Broad | BRD-K91900765 (تنسيق الدفعة الشائع: BRD-K91900765-001-xx-x) |
| الاسم الشائع/الأسماء المستعارة | VX-745; neflamapimod; VRT-031745; VD-31745 |
| الاسم الكيميائي | 5-(2,6-dichlorophenyl)-2-(2,4-difluorophenyl)sulfanylpyrimido[1,6-b]pyridazin-6-one |
| معرف PubChem CID | 3038525 |
| رقم CAS | 209410-46-8 |
| الصيغة الجزيئية / الكتلة الجزيئية النسبية | C19H9Cl2F2N3OS; 436.27 g/mol |
| SMILES القانوني | C1=CC(=C(C(=C1)Cl)C2=C3C=CC(=NN3C=NC2=O)SC4=C(C=C(C=C4)F)F)Cl |
| InChIKey | VEPKQEUBKLEPRA-UHFFFAOYSA-N |
| الهدف الفارماكولوجي الرئيسي المعتمد | MAPK14/p38α؛ كما تم الإبلاغ عن تثبيط p38β بانتقائية أقل من p38α |
الجدول 6: المعلومات الكيميائية والدوائية لمركب BRD-K91900765/VX-745. يلخص الجدول معرفات المركب، والأسماء المستعارة، والاسم الكيميائي، والصيغة الجزيئية، والكتلة الجزيئية، والواصفات التركيبية، والهدف الدوائي المعتمد لمركب BRD-K91900765/VX-745.
| معرف CurPocket | درجة Vina (kcal/mol) | حجم التجويف (ų) | المركز (x, y, z) | حجم الإرساء (x, y, z) |
| C1 | -7.5 | 7568 | 49, 15, 4 | 34, 33, 35 |
| C4 | -7 | 160 | 46, 0, 4 | 22, 22, 22 |
| C3 | -6 | 208 | 34, 15, 9 | 22, 22, 22 |
| C2 | -5.8 | 465 | 45, -6, 19 | 22, 22, 22 |
| C5 | -5.1 | 150 | 63, 0, 20 | 22, 22, 22 |
الجدول 7: جيوب الارتباط المتوقعة لـ BRD-K91900765/VX-745 مع CXCL10 (PDB ID: 1LV9). يوضح الجدول معرفات التجويفات المصنفة، ودرجات Vina، وأحجام التجويفات، ومراكز صندوق الارتباط، وأبعاد صندوق الارتباط التي تم إنشاؤها بواسطة CB-Dock2.
| معرف CurPocket | درجة Vina (kcal/mol) | حجم التجويف (ų) | المركز (x, y, z) | حجم الإرساء (x, y, z) |
| C3 | -7.6 | 1593 | 26, 35, 70 | 22, 22, 22 |
| C2 | -7.5 | 1927 | 25, 21, 60 | 35, 22, 22 |
| C1 | -7.4 | 5420 | 32, 37, 48 | 35, 22, 31 |
| C5 | -6 | 464 | 26, 5, 48 | 22, 22, 22 |
| C4 | -5.3 | 683 | 59, 32, 39 | 22, 22, 22 |
الجدول 8: جيوب الارتباط المتوقعة لـ BRD-K91900765/VX-745 مع JUN (PDB ID: 1JUN). يوضح الجدول معرفات التجويف المرتبة، ودرجات Vina، وأحجام التجويف، ومراكز صندوق الارتباط، وأبعاد صندوق الارتباط التي تم إنشاؤها بواسطة CB-Dock2.
| معرف CurPocket | درجة Vina (كيلو كالوري/مول) | حجم التجويف (ų) | المركز (س، ص، ع) | حجم الإرساء (س، ص، ع) |
| سي 1 | -7.5 | 583 | 15, 4, 17 | 22, 22, 22 |
| C3 | -7.2 | 146 | 19, 21, 24 | 22, 22, 22 |
| C4 | -6.6 | 141 | 31, 19, 15 | 22, 22, 22 |
| سي ٢ | -6.2 | 273 | 38, 9, 24 | 22, 22, 22 |
| سي 5 | -6.2 | 125 | 27, -7, 10 | 22, 22, 22 |
الجدول 9: جيوب الإرساء المتوقعة لـ BRD-K91900765/VX-745 مع IFIH1 (PDB ID: 3B6E). يوضح الجدول معرفات التجويفات المصنفة، ودرجات Vina، وأحجام التجويفات، ومراكز صندوق الإرساء، وأبعاد صندوق الإرساء التي تم إنشاؤها بواسطة CB-Dock2.
| معرف CurPocket | درجة Vina (كيلو كالوري/مول) | حجم التجويف (ų) | المركز (x, y, z) | حجم الالتحام (x, y, z) |
| C1 | -8.7 | 523 | -18, -14, -5 | 22, 22, 22 |
| C4 | -7.3 | 262 | -13, -6, -9 | 22, 22, 22 |
| C3 | -7 | 306 | 12, 12, -7 | 22, 22, 22 |
| C2 | -6.9 | 408 | -3, 1, -12 | 22, 22, 22 |
| C5 | -6.2 | 179 | 24, 25, 13 | 22, 22, 22 |
الجدول 10: جيوب الارتباط المتوقعة لـ BRD-K91900765/VX-745 مع MX1 (PDB ID: 5GTM). يوضح الجدول معرفات التجويف المرتبة، ودرجات Vina، وأحجام التجويف، ومراكز صندوق الارتباط، وأبعاد صندوق الارتباط التي تم إنشاؤها بواسطة CB-Dock2.
| معرف CurPocket | درجة Vina (كيلو كالوري/مول) | حجم التجويف (ų) | المركز (x, y, z) | حجم الإرساء (x، y، z) |
| C2 | -8.1 | 7347 | 112, 137, 148 | 33, 28, 35 |
| C3 | -8.1 | 2604 | 124, 124, 176 | 30, 22, 22 |
| سي 1 | -8 | 7676 | 137, 112, 148 | 34, 29, 35 |
| C5 | -6.9 | 1976 | 117, 157, 88 | 22, 22, 22 |
| C4 | -6.6 | 2040 | 132, 92, 91 | 22, 22, 22 |
الجدول 11: جيوب الارتباط المتوقعة لـ BRD-K91900765/VX-745 مع TLR7 (PDB ID: 7CYN). يوضح الجدول معرفات التجويفات المصنفة، ودرجات Vina، وأحجام التجويفات، ومراكز صندوق الارتباط، وأبعاد صندوق الارتباط التي تم إنشاؤها بواسطة CB-Dock2.
| الفئة | المَعلَمة | النتيجة | التفسير |
| الخاصية الفيزيائية الكيميائية | الوزن الجزيئي | 436.27 g/mol | أقل من 500 Da، مما يحقق حد الوزن الجزيئي حسب قواعد Lipinski |
| الخاصية الفيزيائية الكيميائية | cLogP | تقريباً 5.49 | أعلى قليلاً من 5، مما يشير إلى ألفة عالية للدهون والحاجة إلى مراعاة الذوبانية والارتباط غير النوعي |
| الخاصية الفيزيائية الكيميائية | TPSA | تقريباً 47.26 Ų | مساحة سطح قطبية منخفضة، وهو ما يتوافق مع نفاذية غشائية مواتية محتملة |
| شبه الدوائية | HBA/HBD | May-00 | يحقق حدود Lipinski لمستقبلات المانحات ومستقبلات الروابط الهيدروجينية |
| شبه الدوائية | الروابط القابلة للدوران | 3 | مرونة تشكيلية منخفضة، وهي مواتية لتشكيلات ارتباط مستقرة |
| التنبيهات الهيكلية | تنبيهات PAINS/Brenk | لم تكتشف | لم يتم اكتشاف أي تداخلات شائعة في جميع المقاييس أو تنبيهات هيكلية تفاعلية |
| تنبؤ السمية | طفرات Ames | تنبؤ بعدم وجود سمية Ames | يشير إلى انخفاض خطر حدوث الطفرات المتوقع؛ ولا تزال المصادقة التجريبية مطلوبة |
| تنبؤ السمية | القدرة المسرطنة | تنبؤ بعدم وجود قدرة مسرطنة | يشير إلى انخفاض خطر الإصابة بالسرطان على المدى الطويل المتوقع نسبياً؛ ولا تزال المصادقة التجريبية مطلوبة |
| ملاحظة فارماكوكينيتيكية | التوافر الفموي/النفاذية الدماغية | تشير الدراسات وقواعد البيانات إلى أنه جزيء صغير متاح فموياً ونافذ للدماغ | يتوافق مع خلفية تطويره كمثبط لـ p38α؛ ولا تزال إعادة التقييم مطلوبة لاستطبابات PH |
الجدول 12: التوقعات الأولية للخصائص الفيزيائية والكيميائية، ومحاكاة الخصائص الدوائية، وADMET، والسمية لمركب BRD-K91900765/VX-745. يلخص الجدول الخصائص الفيزيائية والكيميائية المتوقعة، ومقاييس محاكاة الخصائص الدوائية، والتنبيهات الهيكلية، ونقاط نهاية السمية، والخصائص الحركية الدوائية. وتُعد هذه التوقعات الحسابية أولية ولا تحل محل التحقق التجريبي من الحركية الدوائية أو السمية.
| معرف CurPocket | درجة Vina (كيلو كالوري/مول) | حجم التجويف (ų) | المركز (x, y, z) | حجم الالتحام (x، y، z) |
| C1 | -7.9 | 3560 | 2, 22, 34 | 22, 31, 31 |
| C5 | -7.5 | 254 | -9, 28, 60 | 22, 22, 22 |
| C3 | -7.4 | 351 | 12, 7, 37 | 22, 22, 22 |
| C2 | -6.3 | 827 | 18, 5, 28 | 22, 22, 22 |
| C4 | -6.3 | 334 | -16, 17, 38 | 22, 22, 22 |
الجدول 13: جيوب الارتباط المتوقعة لمركب BRD-K91900765/VX-745 مع هدفه الفارماكولوجي المعروف MAPK14/p38α (PDB ID: 1OUK)، والمدرج كتحليل مرجعي إيجابي. يوضح الجدول معرفات التجويفات مرتبة، ونتائج Vina، وأحجام التجويفات، ومراكز صندوق الارتباط، وأبعاد صندوق الارتباط التي تم إنتاجها باستخدام نفس سير عمل الارتباط المطبق على البروتينات الخمسة المرتبطة بالمؤشرات الحيوية.
بشكل جماعي، تدعم تحليلات الاكتشاف ونتائج qRT-PCR اعتبار CXCL10 و JUN و IFIH1 و MX1 و TLR7 كمؤشرات حيوية مرشحة لمرض PH/PAH مرتبطة بخلل التنظيم المناعي الالتهابي وإعادة تشكيل الأوعية الدموية الرئوية، على الرغم من أن تكرار النتائج المستقل عبر GSE117261 كان أقوى بالنسبة لـ JUN ومتغيراً بالنسبة للجينات الأخرى. ويُعد BRD-K91900765/VX-745 مرشحاً لإعادة توظيف الأدوية تم تحديده بناءً على أولويات حسابية مع آلية محتملة لتثبيط MAPK14/p38α؛ وتتطلب التفسيرات العلاجية التحقق من ارتباط الهدف، والاختبارات الخلوية، والحركية الدوائية، والسمية، ونماذج الحيوانات قبل اعتمادها.
توفر البيانات:
جميع مجموعات بيانات الترانسكريبتوم العامة المستخدمة في هذه الدراسة متاحة في قاعدة بيانات Gene Expression Omnibus تحت أرقام الوصول GSE22356 وGSE33463 وGSE48149 وGSE117261 وGSE210248. وقد تم تجميع كافة ملفات البرمجة، ومجموعات البيانات المعالجة، وبيانات qRT-PCR الخام والمحللة مجهولة الهوية، ومخرجات النماذج، وملفات مدخلات ومخرجات الالتحام الجزيئي في مستودع Zenodo منظم. يتضمن المستودع ملف README يصف كل ملف، وإصدارات البرمجيات والحزم، وترتيب تنفيذ النصوص البرمجية، وخطوات إعادة الإنتاج الكاملة - https://zenodo.org/records/21682282
المناقشة
تم تطوير سير عمل متكامل وقابل للتكرار لتحديد المؤشرات الحيوية الجزيئية المرتبطة بـ PH/PAH والمركبات العلاجية المرشحة، وذلك من خلال الدمج بين بيانات النسخ العامة (transcriptomics)، وتحليل شبكة التعبير الجيني المشترك الموزون، والإثراء الوظيفي، وتحليل شبكة التفاعل بين البروتينات، وثلاث خوارزميات للتعلم الآلي، والتحقق الخارجي، وتفسير النسخ أحادي الخلية، وتأكيد تفاعل البوليميراز المتسلسل العكسي الكمي (qRT-PCR)، وفحص خريطة الاتصال (Connectivity Map)، والرسو الجزيئي. وقد تم تحديد CXCL10 وJUN وIFIH1 وMX1 وTLR7 باستمرار كجينات ميزات أساسية، حيث تم تعيينها مجتمعة ضمن محور جزيئي مرتبط بالاستجابة الالتهابية المناعية والإنترفيرون. وتدعم هذه النتائج المفهوم القائل بأن PH/PAH ليست مجرد اضطراب في الديناميكا الدموية، بل هي مرض معقد لإعادة تشكيل الأوعية الدموية يتضمن التنشيط المناعي، وإشارات الالتهاب، والاستشعار الفطري للأحماض النووية، وتغيرات في المظهر الخلوي والبنيوي2,5,6.
تم دعم الإمكانات التشخيصية للجينات الخمسة من خلال اختيار الميزات باستخدام خوارزميات متعددة وتحليل منحنى خصائص التشغيل (ROC) في مجموعة الاكتشاف. وكانت عملية التحقق المستقلة في GSE117261 متباينة بدلاً من أن تكون موحدة: حيث استوفى JUN معايير معدل الاكتشاف الكاذب (FDR) والمساحة تحت المنحنى (AUC) المحددة مسبقاً، وأظهر CXCL10 زيادة اسمية متسقة من حيث الاتجاه دون تحقيق دلالة إحصائية لمعدل الاكتشاف الكاذب (FDR) على مستوى النسخ الجيني بالكامل، بينما أظهر IFIH1 و MX1 تكراراً محدوداً، وأظهر TLR7 اتجاهاً متناقضاً. ولا تدعم هذه النتائج الادعاء بأنه تم التحقق من الجينات الخمسة جميعاً بشكل مستقل، وتشير إلى تأثيرات محتملة لتكوين المجموعة، وتغاير الأنسجة، والاختلافات في المنصات المستخدمة، وشدة المرض. وفي المقابل، أكد تحليل qRT-PCR في 20 عينة من أنسجة الرئة لمرضى PAH و20 عينة ضابطة وجود زيادة تنظيمية كبيرة في جميع الجينات الخمسة وأداءً جيداً لمنحنى ROC لكل جين على حدة.
حقق نموذج الانحدار اللوجستي لتقنية qRT-PCR المكون من خمسة جينات مساحة تحت المنحنى (AUC) ظاهرة بلغت 1.000 (بفاصل ثقة 95%، 1.000–1.000)، وظلت قيمة AUC المجمعة خارج الطية 1.000 في 100 تحليل متكرر من التحقق المتقاطع الخماسي الطبقي. ومع ذلك، فقد تم تطوير النموذج باستخدام 40 عينة بيولوجية فقط، ويمكن أن يؤدي الفصل التام في مجموعة استرجاعية صغيرة إلى تقديرات أداء متفائلة وغير مستقرة. لذا، يجب اعتبار هذه اللوحة بصمة جزيئية استكشافية بدلاً من كونها أداة تشخيصية معتمدة سريرياً. وتبرز الحاجة إلى مجموعات أكبر من مراكز متعددة، ومعاملات نموذج ثابتة ومحددة مسبقاً، وتحقق على مستوى البروتين، وكيمياء نسيجية مناعية، واختبارات استشرافية قبل الانتقال إلى التطبيق السريري.
من بين الجينات الأساسية الخمسة، قد يعمل CXCL10 على تعزيز تجنيد الخلايا المناعية وتضخيم الالتهاب الموضعي داخل البيئة المجهرية للأوعية الدموية الرئوية. ويشارك كل من IFIH1 وTLR7 في الاستشعار الفطري للأحماض النووية، وقد يعكسان تفعيل مسارات التهابية شبيهة بمضادات الفيروسات. أما MX1 فهو جين كلاسيكي محفز بالإنترفيرون، وقد يمثل علامة تدفقية لتفعيل مسار إنترفيرون النوع الأول. بينما يعد JUN عامل نسخ مستجيب للإجهاد يربط بين التحفيز الالتهابي وتكاثر الخلايا، والموت الخلوي المبرمج، وإعادة تشكيل الأنسجة. ومعاً، تشير هذه الجينات إلى نموذج متماسك بيولوجياً تتفاعل فيه عملية التفعيل المناعي الفطري وإشارات الإنترفيرون مع عمليات إعادة تشكيل الأوعية الدموية في حالات PH/PAH. ويتوافق هذا التفسير مع الأدلة السابقة التي تشير إلى أن الالتهاب، والمناعة، والمسارات المرتبطة بالإنترفيرون تساهم في البيولوجيا المرضية لـ PAH2,5,6.
قدم التحقق من الخلايا المفردة سياقاً ميكانيكياً للنتائج المستمدة من تحليل الكتلة الحيوية. أشارت مجموعة البيانات GSE210248 إلى أن إعادة تشكيل الشرايين الرئوية في حالات ارتفاع ضغط الدم الشرياني الرئوي (PAH) كانت مصحوبة بتغير في التواصل بين الخلايا المناعية والخلايا الهيكلية الوعائية، بما في ذلك الخلايا العضلية الملساء، والخلايا الليفية، والخلايا البطانية، والخلايا الوحيدة/البلاعم. ويدعم وجود حالات نمطية متعددة للخلايا العضلية الملساء، بما في ذلك الخلايا الانقباضية، والتخليقية، والمستشعرة للأكسجين/الشبيهة بالخلايا الحولية، والشبيهة بالخلايا الليفية، نموذجاً للمرض تحدث فيه عملية التنشيط المناعي وإعادة التشكيل الهيكلي للخلايا بشكل متزامن. وتعد هذه الأدلة الخلوية مهمة لأن إشارات النسخ الخاصة بالكتلة الحيوية قد تنشأ من تغير في نسب الخلايا، أو ارتشاح الخلايا المناعية، أو تغيرات نسخية في الخلايا الوعائية المقيمة. وبناءً على ذلك، يضع تحليل الخلايا المفردة كلاً من CXCL10 وJUN وIFIH1 وMX1 وTLR7 ضمن نظام بيئي متعدد الخلايا لإعادة تشكيل الأوعية الرئوية بدلاً من كونها عملية مرتبطة بنوع خلوي واحد18,19,20,21.
حدد تحليل إعادة توظيف الأدوية المركب BRD-K91900765، المقابل لـ VX-745/neflamapimod، كأعلى مرشح حاسوبي تصنيفاً. يُعد VX-745 مثبطاً انتقائياً لـ p38α/MAPK14، وتجعل علاقته بمسارات الإجهاد الالتهابي استخدامه معقولاً من الناحية الآلية في سياق الالتهاب المرتبط بـ PH/PAH30. وبناءً على ذلك، تم إدراج عملية الإرساء (Docking) ضد MAPK14/p38α كتحليل مرجعي إيجابي ذي صلة آلية. وفي المقابل، كان الإرساء ضد CXCL10 وJUN وIFIH1 وMX1 وTLR7 استكشافياً وأشار فقط إلى توافق بنيوي متوقع؛ ولم يثبت أن هذه البروتينات المرتبطة بالمؤشرات الحيوية هي أهداف مباشرة لـ VX-745 أو يؤكد حدوث ارتباط مباشر، أو تثبيط للهدف، أو فعالية علاجية. والفرضية الأكثر قبولاً من الناحية البيولوجية هي أن VX-745 قد يعدل بشكل غير مباشر البصمة النسخية المرتبطة بالمناعة الالتهابية والإنترفيرون من خلال تثبيط MAPK14. وتظل تنبؤات خريطة الاتصال (Connectivity Map)، ودرجات الإرساء، وتقديرات ADMET أدلة حاسوبية. ويجب أن تشمل الأعمال المستقبلية مقايسات الارتباط بالهدف الكيميائي الحيوي، وتجارب على الخلايا البطانية وخلايا العضلات الملساء في الشرايين الرئوية، ونماذج التحفيز الالتهابي، وتقييمات الحركية الدوائية والسموم، والتحقق من الفعالية في نماذج حيوانية.
سلطت الدراسات التجريبية الحديثة حول فرط ضغط الدم الرئوي الناجم عن نقص الأكسجة الضوء أيضاً على أهمية التواصل بين الخلايا المتعادلة وخلايا الأوعية الرئوية. وقد أُفيد بأن التفاعلات التي يتوسطها HCK بين الخلايا المتعادلة وخلايا العضلات الملساء الشريانية الرئوية، والتفاعلات التي يتوسطها SERPINB3 بين الخلايا المتعادلة والخلايا البطانية، تساهم في إعادة تشكيل الأوعية الرئوية31˒32. ويُعد محور SERPINB3–STAT1/3 ذا صلة وثيقة بالنتائج الحالية لأن تحليلات النسخ المتنقلة كشفت عن وجود إشارات مرتبطة بالإنترفيرون، وSTAT1، وJAK–STAT. وتدعم هذه الملاحظات مجتمعة التفسير القائل بأن تنشيط الخلايا المناعية والتواصل مع الخلايا الهيكلية الوعائية قد يساهم في تطور PH/PAH.
تتمتع هذه الدراسة بعدة نقاط قوة؛ حيث تم استخدام مجموعات بيانات عامة متعددة وتصحيح تأثير الدفعة (batch-effect correction) لتقليل الانحياز الخاص بمجموعات البيانات. كما تم دمج تحليل التعبير التفاضلي، وتحليل شبكة التعبير الجيني المشترك الموزون، وتحليل التفاعل بين البروتينات، وثلاث خوارزميات للتعلم الآلي لتحسين قوة الميزات. وقد وفر التحقق المستقل من العينات الكلية (bulk validation)، وتأكيد qRT-PCR، وأدلة الخلية الواحدة، طبقات تكميلية ولكن غير متطابقة من الأدلة. ومن ناحية أخرى، تسلط النتائج غير المتجانسة لـ GSE117261 والمجموعة الصغيرة من qRT-PCR الضوء على قيود مهمة، بما في ذلك عدم اكتمال التكرار الخارجي، والتأثيرات المحتملة الخاصة بالأنسجة والمنصات، ومخاطر الإفراط في التخصيص (overfitting). كما تم توسيع نطاق اكتشاف المؤشرات الحيوية ليشمل فحص المركبات المرشحة، إلا أن تحليلات الالتحام (docking analyses) تظل في مرحلة توليد الفرضيات. ويجب أن تعمل الدراسات المستقبلية على التحقق من الجينات الخمسة في مجموعات مستقلة أكبر باستخدام النسخ المكاني (spatial transcriptomics)، والبروتوميات، والكيمياء النسيجية المناعية، ونماذج العضويات أو نماذج الأوعية الدموية على شريحة (vascular-on-chip). وبوجه عام، تظل CXCL10 وJUN وIFIH1 وMX1 وTLR7 مؤشرات حيوية مرشحة لمرض PH/PAH مرتبطة بإعادة تشكيل الأوعية الدموية المناعية الالتهابية والمتعلقة بالإنترفيرون، بينما يُعد BRD-K91900765/VX-745 مرشحاً لإعادة توظيف الأدوية حاسوبياً، وتتطلب صلاحه العلاجية تحققاً تجريبياً.
الإفصاحات
يصرح المؤلفون بعدم وجود تضارب في المصالح.
شكر وتقدير
تم دعم هذه الدراسة من قبل مشروع بناء مقاطعة هونان الابتكارية (رقم 2022JJ30465).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 2× SYBR Green PCR Mastermix | Beijing Solarbio Science & Technology Co., Ltd. | Catalog no. SR1110 | تضخيم PCR كمي في الوقت الحقيقي قائم على الصبغة والكشف عن الفلورة |
| AI21.msvmRFE.R و e1071 | Custom R script with the CRAN e1071 package | AI21.msvmRFE.R; e1071 v1.7-17 | آلة ناقلات الدعم-حذف الميزات العودي |
| أجاروز | Beijing Solarbio Science & Technology Co., Ltd. | Catalog no. A8201; CAS 9012-36-6 | تقييم سلامة RNA الكلي بواسطة الفصل الكهربائي لهلام الأجاروز |
| جهاز الفصل الكهربائي لهلام الأجاروز | Beijing Liuyi Biotechnology Co., Ltd. | Model DYCZ-24DN | التقييم الكهربائي لسلامة RNA |
| محرك تسجيل AutoDock Vina | Center for Computational Structural Biology, Scripps Research | v1.2.0; RRID: SCR_011958 | تسجيل وضعية البروتين والرابط ضمن سير عمل CB-Dock2 |
| CB-Dock2 | Cao Laboratory, CB-Dock2 web server | v2.0; accessed July 2026 | الكشف عن التجويف الأعمى والرسو الجزيئي لـ VX-745 مع هياكل البروتين المختارة |
| CellChat | CellChat R package | v2.1.2 | استنتاج وتصور التواصل بين الخلايا من مصفوفة التعبير أحادية الخلية |
| CellChatDB.human | Distributed with the CellChat R package | CellChatDB.human; Secreted Signaling subset; minimum cell threshold = 10 | قاعدة بيانات تفاعلات الرابط-المستقبل البشرية لـ CellChat |
| clusterProfiler | Bioconductor R package | v4.20.0; Bioconductor release 3.23 | تحليلات إثراء الوجود الجيني (Gene Ontology) وموسوعة كيوتو للجينات والجينومات |
| خريطة الاتصال (CMap/CLUE) | Broad Institute | L1000/CLUE resource; RRID: SCR_016204; accessed July 2026 | التحليل الحسابي لإعادة توظيف الأدوية |
| بادئات قليلة النوكليوتيد مخصصة | Beijing Solarbio Science & Technology Co., Ltd. | Custom synthesized; primer sequences provided in Table 2 | تضخيم ACTB و CXCL10 و JUN و IFIH1 و MX1 و TLR7 |
| cytoHubba | Cytoscape App Store | v0.1 | تصنيف الجينات المركزية بناءً على الدرجة في شبكة تفاعل البروتين-البروتين |
| Cytoscape | Cytoscape Consortium | v3.10.4; RRID: SCR_003032 | تصور وتحليل شبكة تفاعل البروتين-البروتين |
| DrugBank | DrugBank Knowledgebase | v6.0; RRID: SCR_002700 | تحديد هوية المركب وتنسيق المعلومات الفارماكولوجية |
| نظام توثيق الهلام | Beijing Liuyi Biotechnology Co., Ltd. | Model WO-9413B | تصور وتسجيل نتائج سلامة RNA في هلام الأجاروز |
| أطلس تعبير الجينات (GEO) | National Center for Biotechnology Information | GSE22356, GSE33463, GSE48149, GSE117261, and GSE210248; RRID: SCR_005012 | استرجاع مجموعات بيانات الترانسكريبتوم الكلية وأحادية الخلية |
| GEOquery | Bioconductor R package | v2.80.0; Bioconductor release 3.23 | التحميل والاستيراد البرمجي لبيانات التعبير والنمط الظاهري من GEO |
| glmnet | CRAN R package | v5.0 | الانحدار اللوجستي باستخدام مشغل الاختيار والتقليص المطلق الأدنى والنمذجة اللوجستية المنتظمة |
| limma | Bioconductor R package | v3.68.0; Bioconductor release 3.23; RRID: SCR_010943 | تحليل التعبير التفاضلي وإحصائيات بايز التجريبية |
| مقياس الطيف الضوئي NanoDrop | Thermo Fisher Scientific | NanoDrop ND-1000; software v3.8 | قياس تركيز RNA ونسب النقاء A260/280 و A260/230 |
| NCBI Primer-BLAST | National Center for Biotechnology Information | Web tool; RRID: SCR_003095; accessed July 2026 | التحقق من خصوصية البادئات |
| pROC | CRAN R package | v1.19.0.1; RRID: SCR_024286 | تحليل خصائص تشغيل المستقبل، وفترات ثقة DeLong، ونقاط قطع مؤشر Youden |
| بنك بيانات البروتين (PDB) | RCSB Protein Data Bank | CXCL10: 1LV9; JUN: 1JUN; IFIH1: 3B6E; MX1: 5GTM; TLR7: 7CYN; MAPK14/p38α: 1OUK; RRID: SCR_012820 | استرجاع هياكل البروتين المحددة تجريبياً للرسو الجزيئي |
| PubChem | National Center for Biotechnology Information | PubChem CID 3038525; RRID: SCR_004284 | استرجاع الهيكل ثلاثي الأبعاد والمعرفات الكيميائية لـ BRD-K91900765/VX-745 |
| R | R Foundation for Statistical Computing | v4.6.1; RRID: SCR_001905 | الحوسبة الإحصائية، ومعالجة البيانات، والتعلم الآلي، والتصور |
| randomForest | CRAN R package | v4.7-1.2 | اختيار الميزات باستخدام الغابة العشوائية وتصنيف أهمية المتغيرات |
| نظام PCR في الوقت الحقيقي | Stratagene, now Agilent Technologies | Mx3000P Real-Time PCR System | تضخيم qRT-PCR، والتحصيل الفلوري، وتحليل منحنى الانصهار، وتصدير قيم Ct |
| Seurat | CRAN R package; Satija Laboratory | v5.5.1; RRID: SCR_016341 | ضبط جودة تسلسل RNA أحادي الخلية، والتطبيع، وتقليل الأبعاد، والتجميع، والتوسيم |
| STRING | STRING Consortium | v12.0; RRID: SCR_005223 | بناء شبكة تفاعل البروتين-البروتين |
| sva (ComBat) | Bioconductor R package | v3.60.0; Bioconductor release 3.23 | تصحيح تأثيرات الدفعة بين مجموعات البيانات |
| SwissADME | Swiss Institute of Bioinformatics | Web server; accessed July 2026 | الفحص المسبق لمشابهة الدواء، والخصائص الفيزيائية والكيميائية، و ADME |
| طقم استخلاص RNA الكلي | Beijing Solarbio Science & Technology Co., Ltd. | Catalog no. R1200 | استخلاص وتنقية RNA الكلي من عينات أنسجة الرئة |
| طقم Universal RT-PCR (AMV) | Beijing Solarbio Science & Technology Co., Ltd. | Catalog no. RP1200 | النسخ العكسي لـ RNA الكلي إلى DNA مكمل |
| WGCNA | CRAN R package | v1.74 | بناء شبكة التعبير الجيني المشترك الموزونة وتحليل العلاقة بين الوحدة والسمة |
المراجع
- Simonneau G, et al. Haemodynamic definitions and updated clinical classification of pulmonary hypertension. Eur Respir J. 2019;53(1):1801913. doi: 10.1183/13993003.01913-2018.
- Rabinovitch M, Guignabert C, Humbert M, Nicolls MR. Inflammation and immunity in the pathogenesis of pulmonary arterial hypertension. Circ Res. 2014;115(1):165–175.
- Humbert M, et al. 2022 ESC/ERS Guidelines for the diagnosis and treatment of pulmonary hypertension. Eur Heart J. 2022;43(38):3618–3731.
- Galiè N, et al. 2015 ESC/ERS Guidelines for the diagnosis and treatment of pulmonary hypertension. Eur Respir J. 2015;46(4):903–975.
- Soon E, et al. Elevated levels of inflammatory cytokines predict survival in idiopathic and familial pulmonary arterial hypertension. Circulation. 2010;122(9):920–927.
- George PM, et al. Evidence for the involvement of type I interferon in pulmonary arterial hypertension. Circ Res. 2014;114(4):677–688.
- Subramanian A, et al. A next-generation Connectivity Map: L1000 platform and the first 1,000,000 profiles. Cell. 2017;171(6):1437–1452.e17.
- Leek JT, et al. The sva package for removing batch effects and other unwanted variation in high-throughput experiments. Bioinformatics. 2012;28(6):882–883.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47. doi: 10.1093/nar/gkv007.
- Langfelder P, Horvath S. WGCNA: an R package for weighted correlation network analysis. BMC Bioinformatics. 2008;9:559. doi: 10.1186/1471-2105-9-559.
- Yu G, Wang LG, Han Y, He QY. clusterProfiler: an R package for comparing biological themes among gene clusters. OMICS. 2012;16(5):284–287.
- Kanehisa M, Goto S. KEGG: Kyoto Encyclopedia of Genes and Genomes. Nucleic Acids Res. 2000;28(1):27–30.
- Szklarczyk D, et al. The STRING database in protein–protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 2023;51(D1):D638–D646.
- Friedman J, Hastie T, Tibshirani R. Regularization paths for generalized linear models via coordinate descent. J Stat Softw. 2010;33(1):1–22.
- Guyon I, Weston J, Barnhill S, Vapnik V. Gene selection for cancer classification using support vector machines. Mach Learn. 2002;46:389–422.
- Breiman L. Random forests. Mach Learn. 2001;45(1):5–32.
- Robin X, et al. pROC: an open-source package for R and S+ to analyze and compare ROC curves. BMC Bioinformatics. 2011;12:77. doi: 10.1186/s12859-011-0077-8.
- Stearman RS, et al. Systems analysis of the human pulmonary arterial hypertension lung transcriptome. Am J Respir Cell Mol Biol. 2019;60(6):637–649.
- Crnkovic S, et al. Single-cell transcriptomics reveals skewed cellular communication and phenotypic shift in pulmonary artery remodeling. JCI Insight. 2022;7(20):e153471. doi: 10.1172/jci.insight.153471.
- Hao Y, et al. Integrated analysis of multimodal single-cell data. Cell. 2021;184(13):3573–3587.e29.
- Jin S, et al. Inference and analysis of cell–cell communication using CellChat. Nat Commun. 2021;12(1):1088. doi: 10.1038/s41467-021-21246-9.
- Bustin SA, et al. MIQE 2.0: revision of the Minimum Information for Publication of Quantitative Real-Time PCR Experiments guidelines. Clin Chem. 2025;71(6):634–651.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2−ΔΔCt method. Methods. 2001;25(4):402–408.
- Kim S, et al. PubChem 2023 update. Nucleic Acids Res. 2023;51(D1):D1373–D1380.
- Knox C, et al. DrugBank 6.0: the DrugBank Knowledgebase for 2024. Nucleic Acids Res. 2024;52(D1):D1265–D1275.
- Daina A, Michielin O, Zoete V. SwissADME: a free web tool to evaluate pharmacokinetics, drug-likeness, and medicinal chemistry friendliness of small molecules. Sci Rep. 2017;7:42717. doi: 10.1038/srep42717.
- Burley SK, et al. RCSB Protein Data Bank: powerful new tools for exploring 3D structures of biological macromolecules for basic and applied research and education. Nucleic Acids Res. 2021;49(D1):D437–D451. doi: 10.1093/nar/gkaa1038.
- Eberhardt J, Santos-Martins D, Tillack AF, Forli S. AutoDock Vina 1.2.0: new docking methods, expanded force field, and Python bindings. J Chem Inf Model. 2021;61(8):3891–3898. doi: 10.1021/acs.jcim.1c00203.
- Liu Y, et al. CB-Dock2: improved protein-ligand blind docking by integrating cavity detection, docking, and homologous template fitting. Nucleic Acids Res. 2022;50(W1):W159–W164. doi: 10.1093/nar/gkac394.
- Duffy JP, et al. The discovery of VX-745: a novel and selective p38α kinase inhibitor. ACS Med Chem Lett. 2011;2(10):758–763.
- Sheng Y, et al. Crocin inhibits neutrophil migration and activation to treat hypoxic pulmonary hypertension through targeting HCK. Phytomedicine. 2025;148:157334. doi: 10.1016/j.phymed.2025.157334.
- Cui H, et al. Leonurine ameliorates hypoxic pulmonary hypertension by inhibiting cross-talk between neutrophils and endothelial cells via SERPINB3 targeting. Int Immunopharmacol. 2026;176:116467. doi: 10.1016/j.intimp.2026.116467.