بحثت هذه الدراسة في مستويات تعبير miR-3619-5p في مصل المرضى المصابين بداء السكري من النوع الثاني، واستقصت الدور التنظيمي لهذا الجزيء في وظيفة خلايا بيتا (β-cell) البنكرياسية. ينخفض تعبير miR-3619-5p في حالات T2DM، وقد يكون مشاركاً في تنظيم وظيفة خلايا بيتا (β-cell) البنكرياسية من خلال استهداف MTA3.
مقالة بحثية
الأهمية السريرية للتعبير عن miR-3619-5p لدى المرضى المصابين بداء السكري من النوع الثاني ودوره في تنظيم تكاثر خلايا بيتا البنكرياسية
في هذه المقالة
ملخص
الملخص
تتمثل السمة المرضية الجوهرية لداء السكري من النوع الثاني (T2DM) في البنكرياس βفشل الخلايا؛ لذا، فإن تحديد المؤشرات الحيوية الدورة الدموية الفعالة والأهداف الجزيئية التي تنظم البنكرياس βتتمتع عملية التوازن الخلوي بأهمية عملية بالغة. وباعتبارها جزيئات تنظيمية رئيسية للتعبير الجيني، تلعب miRNAs دوراً هاماً في تكاثر خلايا البنكرياس وموتها المبرمج وإفرازها للأنسولين. β-الخلايا. الغرض من هذه الدراسة هو استقصاء أنماط التعبير والقيمة السريرية لـ miR-3619-5p في مصل مرضى السكري من النوع الثاني (T2DM)، وتوضيح دوره التنظيمي في خلايا البنكرياس β-تكاثر الخلايا. استُخدم تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (RT-qPCR) للكشف عن تعبير miR-3619-5p وMTA3. واستُخدمت منحنيات خصائص تشغيل المستقبل (ROC curves) لتقييم الأداء التشخيصي. كما استُخدمت المعلوماتية الحيوية ومقايسات لوسيفيراز المزدوجة للتحقق من العلاقة بين الهدف والربيطة. وقيس تكاثر الخلايا باستخدام مقايسة CCK-8، بينما فُحص الموت الخلوي المبرمج عبر قياس التدفق الخلوي. وقيست مستويات إفراز الإنسولين باستخدام مقايسة الممتز المناعي المرتبط بالإنزيم (ELISA). وأظهرت النتائج أن تعبير miR-3619-5p وMTA3 كان منخفضاً لدى مرضى السكري من النوع الثاني وفي البنكرياس β-الخلايا. قد يكون miR-3619-5p مؤشراً حيوياً لتشخيص داء السكري من النوع الثاني (T2DM)؛ حيث يؤدي فرط تعبيره إلى تعزيز تكاثر الخلايا، وتثبيط الاستماتة، وزيادة إفراز الإنسولين. ويستهدف miR-3619-5p بروتين MTA3 وينظمه، وهناك ارتباط إيجابي معنوي بينهما. كما يمكن لمحاكي miR-3619-5p أن يعكس الضرر الذي يسببه si-MTA3 لخلايا البنكرياس. β-وظيفة الخلايا. وباختصار، ينخفض مستوى miR-3619-5p في مرض السكري من النوع الثاني (T2DM)، وله قيمة تشخيصية. وقد يشارك miR-3619-5p في تنظيم وظائف البنكرياس. βوظيفة الخلية عن طريق استهداف MTA3.
المقدمة
يتجسد مرض السكري من النوع الثاني (T2DM)، وهو اضطراب أيضي مزمن، بشكل أساسي في مقاومة الأنسولين المصحوبة بفقدان تدريجي لوظيفة إفراز الأنسولين، ويمثل هذا النوع أكثر من 80% من جميع حالات السكري1. وتعد مسببات هذا المرض معقدة، حيث تشمل مزيجاً من العوامل الوراثية والبيئية، بالإضافة إلى اختلالات في التنظيم الخلوي والجزيئي2,3. ونظراً لأن خلايا بيتا (β-cells) البنكرياسية هي الخلايا الأساسية المسؤولة عن إفراز الأنسولين، فإن الانخفاض غير الطبيعي في قدرتها التكاثرية يعد سبباً رئيسياً لعدم كفاية إفراز الأنسولين في مرض السكري من النوع الثاني4. وفي الوقت الحالي، يعتمد التشخيص السريري لمرض السكري من النوع الثاني بشكل أساسي على المؤشرات التقليدية مثل جلوكوز الدم والهيموجلوبين السكري (HbA1c)؛ ومع ذلك، فإن حساسيتها في الفحص المبكر والتنبؤ بتطور المرض محدودة5. لذا، هناك حاجة ملحة لتحديد مؤشرات حيوية حساسة ونوعية وأهداف تنظيمية رئيسية لتوفير استراتيجيات جديدة للتشخيص الدقيق والعلاج لمرض السكري من النوع الثاني.
تحت تأثير السمية الغلوكوزية الناتجة عن فرط سكر الدم المطول، يتقيد تكاثر خلايا بيتا (β-cell) في البنكرياس وتزداد عملية الموت الخلوي المبرمج، مما يؤدي إلى فقدان تدريجي لإفراز الإنسولين المعتمد على الغلوكوز؛ وتُعد هذه العملية عاملاً رئيسياً يدفع بالتطور المستمر للمرض6,7. وتشارك جزيئات الحمض النووي الريبي الميكروي (miRNAs) في عمليات فسيولوجية متنوعة داخل الخلايا8، وتمارس تأثيراً تنظيمياً حاسماً على العمليات الفسيولوجية، بما في ذلك تكاثر خلايا جزر البنكرياس، والموت الخلوي المبرمج، وإفراز الإنسولين9,10. وقد أظهرت دراسات متعددة أن العديد من جزيئات miRNAs يتم التعبير عنها بشكل غير طبيعي في مرض السكري من النوع الثاني (T2DM) وترتبط ارتباطاً وثيقاً بالنشوء المرضي للمرض11,12,13. ويشارك miR-3619-5p في عمليات بيولوجية، تشمل تكاثر الخلايا والموت الخلوي المبرمج، وقد ركزت الأبحاث الحالية حوله بشكل أساسي على مجال علم الأورام14,15. وقد لوحظ تعبير غير طبيعي لـ miR-3619-5p في الأورام الخبيثة، بما في ذلك سرطان الخلايا الحرشفية في الجلد، وسرطان الرئة، وسرطان القولون والمستقيم، وسرطان المعدة، حيث يقوم بتنظيم الجينات المستهدفة للتأثير على تكاثر الخلايا الورمية، وانتقالها، وموتها المبرمج16,17,18,19. ومع ذلك، لا تزال هناك فجوة واضحة في الأبحاث المتعلقة بخصائص التعبير السريري، والأهمية السريرية، وآليات تنظيم وظائف البنكرياس بواسطة miR-3619-5p في مرض السكري من النوع الثاني (T2DM).
باعتباره عضواً رئيسياً في عائلة MTA، يقوم MTA3 بالتوسط في التفاعلات بين البروتينات وتنظيم النسخ الجيني، ويشارك بشكل واسع في عمليات فسيولوجية رئيسية، بما في ذلك تكاثر الخلايا، والموت الخلوي المبرمج، والتمثيل الغذائي20. ركزت الأبحاث الحالية حول MTA3 بشكل أساسي على علم الأورام21,22,23، مع وجود دراسات محدودة تبحث في دوره في الأمراض الأيضية، ولا سيما مرض السكري من النوع الثاني T2DM. وجدت بعض الدراسات أن MTA3، كجين مرتبط بمرض السكري، يشارك في تنظيم تليف الكبد الناجم عن فرط سكر الدم24. وهذا يشير إلى أن MTA3 قد يكون مشاركاً في تطور مرض T2DM؛ ومع ذلك، فإن مسألة ما إذا كان يتم تنظيمه بواسطة miR-3619-5p في سياق مرض T2DM لا تزال بحاجة إلى تأكيد.
وباختصار، فقد اقتصرت الأبحاث الحالية حول miR-3619-5p إلى حد كبير على نماذج الأورام والالتهابات؛ أما ملف تعبيره السريري في داء السكري من النوع الثاني (T2DM) ودوره في البنكرياس βلا تزال اضطرابات التوازن الخلوي واستقلاب الجلوكوز بحاجة إلى مزيد من الاستقصاء. لذا، تهدف هذه الدراسة إلى التحقق من علاقة الاستهداف بين miR-3619-5p وMTA3 من خلال تقييم تعبير miR-3619-5p وأهميته السريرية في مصل المرضى المصابين بداء السكري من النوع الثاني (T2DM)، وبحث دوره التنظيمي في البنكرياس. β-تكاثر الخلايا، مما يوفر أساساً نظرياً جديداً للأبحاث المتعلقة بالإمراض الخاص بمرض السكري من النوع الثاني (T2DM) وللتشخيص والعلاج السريري.
البروتوكول
تمت الموافقة على هذه الدراسة من قبل لجنة أخلاقيات الطب بمستشفى تونغتشو باي الشعبي (رقم الموافقة 2024122001). وتلتزم الإجراءات المستخدمة في هذه الدراسة بمبادئ إعلان هلسنكي. تم الحصول على موافقة مستنيرة من جميع المشاركين الأفراد المدرجين في الدراسة، كما تم الحصول على موافقة للنشر لكل البيانات الخاصة بالأفراد المدرجين في الدراسة.
مشاركو البحث
اختارت هذه الدراسة بأثر رجعي 102 مريضاً مصاباً بداء السكري من النوع الثاني (T2DM) تم تشخيصهم في مستشفانا في الفترة ما بين يناير 2022 ويونيو 2023. واستوفى المشاركون المؤهلون المعايير التشخيصية لداء السكري من النوع الثاني، بما في ذلك وصول مستوى جلوكوز الدم صائماً إلى ≥7.0 mmol/L ومستوى جلوكوز الدم بعد ساعتين من تناول الطعام إلى ≥11.1 mmol/L، ولم يتلقوا علاجاً بالأنسولين أو بالأدوية المضادة لمرض السكري من الجيل الجديد خلال الأشهر الثلاثة السابقة، مع خلوهم من المضاعفات الشديدة التي تصيب القلب أو الكبد أو الكلى أو الأعضاء الأخرى، وعدم وجود تاريخ مرضي للأورام الخبيثة أو أمراض المناعة الذاتية أو الأمراض المعدية، مع توفر سجلات سريرية كاملة. تم استبعاد المرضى المصابين بداء السكري من النوع الأول أو الأنواع المحددة الأخرى من السكري، وأولئك الذين يعانون من حالة إجهاد ناتجة عن عدوى شديدة أو صدمة أو جراحة أو أسباب أخرى، ومن استخدموا الجلوكوكورتيكويد أو مثبطات المناعة أو أدوية مماثلة خلال الأشهر الثلاثة السابقة، بالإضافة إلى النساء الحوامل أو المرضعات. كما شملت الدراسة مجموعة ضابطة مكونة من 80 شخصاً خضعوا لفحوصات صحية روتينية في مستشفانا خلال الفترة نفسها.
جمع العينات
صام جميع المشاركين في الدراسة لمدة تتراوح بين 8-12 h على الأقل؛ حيث جُمع 5 mL من الدم الوريدي في الصباح الباكر ووُزع في أنابيب EP خالية من RNase، ثم تم إجراء طرد مركزي للعينات (3000 × g، لمدة 10 min) لفصل المصل، وحُفظت في درجة حرارة -80 °C لاستخدامها لاحقاً.
زراعة الخلايا ومعالجتها
تمت زراعة خط خلايا بيتا (β-cell) في جزر البنكرياس لدى الجرذ INS-1 في وسط RPMI 1640 يحتوي على 10% FBS و 1% بنسلين-ستريبتوميسين. وزُرعت خلايا INS-1 في وسط يحتوي على 25 mM جلوكوز لإنشاء نموذج للتلف الخلوي الناجم عن الجلوكوز المرتفع (HG)25. أما في المجموعة غير المعالجة، فقد زُرعت خلايا INS-1 في وسط RPMI 1640 (الذي يحتوي على 11.1 mM جلوكوز).
أُجريت عملية عفن الخلية (Transfection) باستخدام طقم عفن يحتوي على محاكيات miR-3619-5p، وضابط سلبي لـ miRNA (miR-NC)، وsi-MTA3، وضابط سلبي (si-NC). تم شراء محاكي miR-3619-5p، ومثبط miR-3619-5p، وsiRNA والضوابط السلبية المقابلة لها جميعاً من شركة RiboBio. كان تركيز محاكي miRNA هو 50 nM؛ وتركيز مثبط miRNA هو 100 nM؛ وتركيز siRNA هو 50 nM. أُجريت التجارب اللاحقة بعد 48 h من عملية عفن الخلية. تظهر التسلسلات ذات الصلة في الجدول التكميلي 1.
تفاعل البوليميراز المتسلسل الكمي مع النسخ العكسي (RT-qPCR)
استُخدم كاشف TRIzol لاستخلاص الحمض النووي الريبوزي (RNA) الكلي من المصل، بينما استُخدمت مجموعة miRNeasy Mini Kit لاستخلاص الـ RNA الكلي من الخلايا. ولكشف miR-3619-5p، أُجري النسخ العكسي باستخدام مجموعة نسخ عكسي؛ وبعد تخليق cDNA، استُخدمت مجموعة كمية miRNA، مع استخدام U6 كضابط داخلي. أما بالنسبة للكشف عن MTA3، فقد أُجري النسخ العكسي إلى cDNA باستخدام مجموعة نسخ عكسي لـ mRNA، ونُفذت عملية RT-qPCR باستخدام مجموعة كمية mRNA، مع استخدام GAPDH كضابط داخلي. وحُللت التغيرات في تعبير miR-3619-5p وMTA3 باستخدام طريقة 2-ΔΔCt. تظهر تسلسلات البادئات في الجدول التكميلي 1.
مقايسة مراسل لوسيفيراز المزدوج (DLR)
تم استنساخ المناطق غير المترجمة في الطرف '3 (3'-UTRs) للنوع البري (WT) والطفرة (MUT) لجين MTA3 التي تحتوي على موقع ارتباط miR-3619-5p في ناقل pmirGLO. تم إجراء عفن مشترك للناقل مع محاكي miR-3619-5p ومثبط miR-3619-5p في خلايا 293T باستخدام كواشف عفن. شملت مجموعات التحكم في العفن: مجموعة بلازميد المراسل الفارغ (Control) ومجموعة عفن التحكم السلبي لـ miRNA (miR-NC). وبعد مرور 48 h، تم قياس نشاط اللوسيفيراز النسبي باستخدام نظام مراسل لوسيفيراز المزدوج، مع استخدام نشاط Renilla luciferase كتحكم داخلي. تتكون كل مجموعة من ثلاث مكررات بيولوجية مستقلة، حيث تتكون كل مكررة بيولوجية من ثلاث مكررات تقنية.
مقايسة تكاثر الخلايا
قم باستزراع الخلايا المنقولة في طبق معايرة ذي 96 بئراً. بعد الزرع لمدة 0 h، و24 h، و48 h، و72 h على التوالي، أضف 10 μL من كاشف CCK-8 إلى كل بئر، ثم حضنها عند 37 °C لمدة 2 h، وقم بقياس الامتصاصية عند 450 nm باستخدام قارئ الأطباق الدقيقة.
مقايسة الموت الخلوي المبرمج
اغسل الخلايا ثلاث مرات باستخدام PBS، ثم أعد تعليقها في 200 μL من محلول الارتباط المنظم الذي يحتوي على 10 μL من Annexin V-FITC و5 μL من PI. تُحضن العينات لمدة 15 min في درجة حرارة الغرفة وفي الظلام. أضف 300 μL من محلول الارتباط المنظم، ثم قم بتحليل الخلايا فوراً باستخدام جهاز قياس التدفق الخلوي لحساب معدل الموت الخلوي المبرمج.
المقايسة المناعية المرتبطة بالإنزيم (ELISA)
تم استزراع الخلايا المحولة في طبق يحتوي على 96 بئراً وتجويعها طوال الليل عند 37 °C. استُبدل وسط الاستزراع بمحلول يحتوي على 25 mM جلوكوز، واستُزرعت الخلايا لمدة 1 h؛ ثم جُمع وسط الاستزراع من خلايا INS-1 المعالجة لقياس إفراز الإنسولين. أُعيد تعليق خلايا INS-1 في ميثانول حمضي، ثم عولجت بالموجات فوق الصوتية، وجُمع الطافي لتحديد محتوى الإنسولين الكلي. استُخدم Rat Insulin ELISA Kit، وأُجري الفحص وفقاً لتعليمات الشركة المصنعة. يعتمد الفحص على المعايير المرجعية المرفقة مع طقم الاختبار لإنشاء منحنى معايرة؛ ويُحسب التركيز المطلق للإنسولين بناءً على قيم الامتصاص للعينات، على أن تكون وحدة التركيز المطلق هي μIU/mL. وأخيراً، تم تقييم قدرة إفراز الإنسولين عن طريق تطبيع مستويات الإنسولين المقاسة في وسط الاستزراع مقابل محتوى الإنسولين الكلي داخل الخلايا. عُرضت البيانات في الرسوم البيانية الإحصائية كقيم التغير المضاعف (fold changes)، والتي حُسبت بالنسبة لمجموعة الضبط.
لطخة وسترن
تم حصاد الخلايا المنقولة من كل مجموعة، وأُضيف إليها محلول تحلل RIPA. حُدد تركيز البروتين الكلي باستخدام طريقة BCA. خُلط 50 μg من البروتين الكلي مع محلول تحميل 5× وغُلي لمدة 10 min. وبعد إجراء الفصل الكهربائي للهلام بولي أكريلاميد-دوديسلفات الصوديوم (SDS-polyacrylamide gel electrophoresis) بتركيز 10%، نُقلت البروتينات إلى غشاء فلوريد متعدد الفينيليدين. تم حجب الغشاء باستخدام حليب منزوع الدسم بتركيز 5% لمدة 1 h؛ ثم أضيفت الأجسام المضادة الأولية MTA3 (1:1000) و GAPDH (1:1000) وحُضنت طوال الليل عند 4 °C؛ غُسل الغشاء باستخدام TBST، ثم أضيف الجسم المضاد الثانوي IgG الماعزي المضاد للأرانب والموسوم بـ HRP (1:1000) وحُضن في درجة حرارة الغرفة لمدة 1 h؛ وتم التصوير باستخدام طريقة التألق الكيميائي ECL.
التحليل الإحصائي
يتم التعبير عن البيانات الكمية في صورة متوسط حسابي ± الانحراف المعياري. وقبل إجراء التحليل الإحصائي، استُخدم اختبار شابيرو-ويلك (Shapiro–Wilk) للتحقق من التوزيع الطبيعي للبيانات، واستُخدم اختبار ليفين (Levene’s test) لتقييم تجانس التباينات، وذلك لتحديد مدى ملاءمة الاختبارات المعلمية. وأشارت نتائج هذه الاختبارات إلى أن جميع البيانات الكمية في هذه الدراسة اتبعت توزيعاً طبيعياً واستوفت فرضية تجانس التباينات؛ وبناءً على ذلك، تم تطبيق الاختبارات المعلمية للتحليل الإحصائي. استُخدم اختبار t للعينات المستقلة لتحليل البيانات من مجموعتين، بينما استُخدم تحليل التباين أحادي الاتجاه (ANOVA) مع اختبار توكي (Tukey) للمقارنات البعدية لإجراء المقارنات بين المجموعات المتعددة. واستُخدمت المخططات المبعثرة لتقييم العلاقات الخطية بين المتغيرات. كما طُبق تحليل ارتباط بيرسون في الحالات التي استوفت فيها فرضيات الطبيعية والخطية. وشمل تحليل ارتباط بيرسون جميع المشاركين البالغ عددهم 102 مشاركاً، ولم يتم استبعاد أي قيم متطرفة. ويعود تكتل النقاط الملاحظ في المخطط المبعثر إلى تداخل ملاحظات العينات. تضمنت جميع التجارب ثلاث عينات مكررة، وكُررت كل تجربة ثلاث مرات. وكانت القيمة الاحتمالية (p-value) لـ <اعتبرت القيمة 0.05 ذات دلالة إحصائية.
النتائج
مقارنة الخصائص الديموغرافية والمعايير الأيضية السريرية بين المشاركين في الدراسة
أظهرت نتائج المقارنة أن مستويات FBG وHbA1c كانت مرتفعة بشكل ملحوظ لدى المرضى المصابين بـ T2DM (P < 0.001)، بينما لم تكن هناك فروق ذات دلالة إحصائية في المعايير الأخرى (P > 0.05) (الجدول 1).
تعبير وأهمية سريرية miR-3619-5p
كشف تحليل RT-qPCR أن تعبير miR-3619-5p في مصل مرضى T2DM كان منخفضاً بشكل ملحوظ (P < 0.001؛ الشكل 1A). وأظهر تحليل منحنى ROC أن قيمة AUC لـ miR-3619-5p في تشخيص T2DM بلغت 0.871 (95% CI: 0.820–0.922) (الشكل 1B). علاوة على ذلك، أظهرت نتائج تحليل ارتباط بيرسون الذي أجري على 102 مريضاً مصاباً بـ T2DM أن تعبير miR‑3619‑5p يرتبط بشكل ملحوظ وعكسي مع FBG (الشكل 1C) و HbA1c (الشكل 1D).
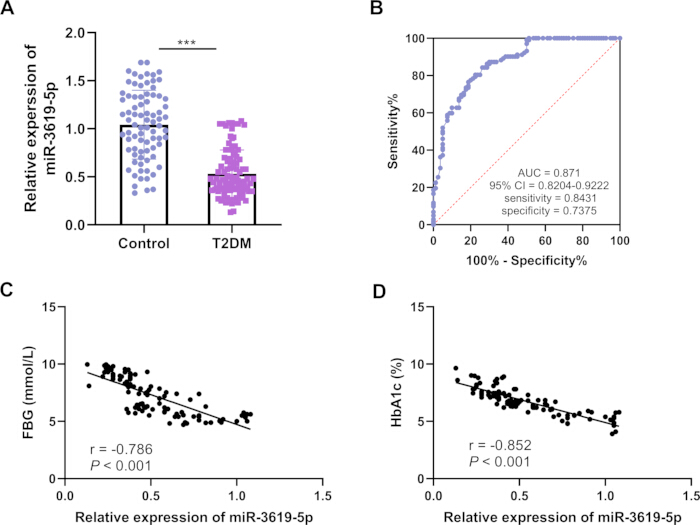
الشكل 1: التعبير والأهمية السريرية لـ miR-3619-5p. (أ) تحليل RT-qPCR لتعبير miR-3619-5p في مصل المرضى المصابين بـ T2DM. (ب) منحنى ROC لتشخيص T2DM باستخدام miR-3619-5p. (ج) تحليل ارتباط بيرسون بين التعبير النسبي لـ miR-3619-5p وسكر الدم الصائم (FBG). (د) تحليل ارتباط بيرسون بين التعبير النسبي لـ miR-3619-5p و HbA1c. تمثل أشرطة الخطأ الانحراف المعياري (SD)؛ مجموعة الضبط، n = 80؛ مجموعة T2DM، n = 102. ***P < 0.001 يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تأثير miR-3619-5p على البنكرياس βوظيفة الخلية
أجرينا فحوصات وظيفية خلوية على خلايا INS-1 البنكرياسية β-خلايا عولجت بالجلوكوز العالي (HG) لمحاكاة تطور مرض السكري من النوع الثاني (T2DM). وكشفت النتائج أن تعبير miR-3619-5p انخفض بشكل ملحوظ بعد العلاج بالجلوكوز العالي (P < 0.001)، بينما أدى ترانسفكشن (transfection) باستخدام محاكي miR-3619-5p إلى زيادة تعبيره بشكل ملحوظ (P < 0.01; الشكل 2-أ). وفيما يتعلق بتكاثر الخلايا وموتها المبرمج، فقد أدت المعالجة بـ HG إلى تثبيط تكاثر الخلايا بشكل ملحوظ وتعزيز الموت المبرمج (P < 0.001)، بينما حفز محاكي miR-3619-5p التكاثر وثبط الموت الخلوي المبرمج بعد المعالجة بـ HG (P < 0.01; الشكل 2ب،جأظهرت نتائج مقايسة الممتز المنيعي المرتبط بالإنزيم (ELISA) أن إفراز الإنسولين انخفض بشكل ملحوظ بعد المعالجة بالجلوكوز المرتفع (HG) (P < 0.001)، بينما أدى محاكي miR-3619-5p إلى زيادة إفراز الإنسولين بعد المعالجة بـ HG (P < 0.01; الشكل 2-د).
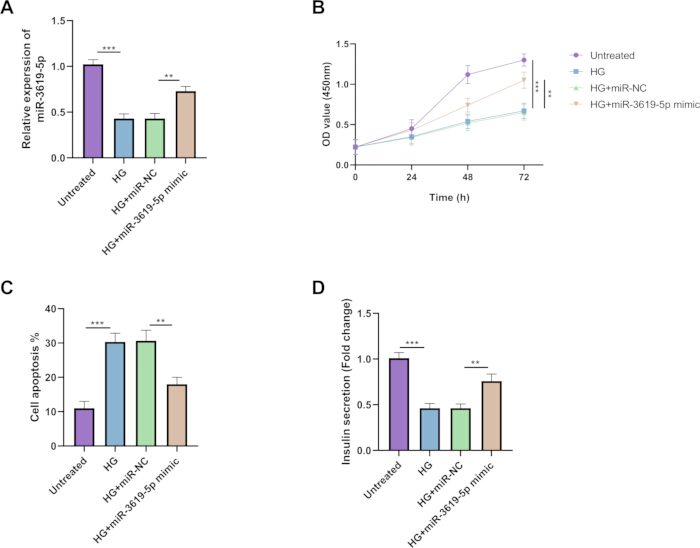
الشكل 2تأثير miR-3619-5p على البنكرياس βوظيفة الخلية. خلايا البنكرياس INS-1 β-عولجت الخلايا بـ HG لمحاكاة تطور مرض السكري من النوع الثاني (T2DM).Aاستُخدم تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي بالتنسخ العكسي (RT-qPCR) للكشف عن تعبير miR-3619-5p في الخلايا.Bتم تقييم تكاثر الخلايا باستخدام مقايسة CCK-8.سياستُخدم قياس التدفق الخلوي لتقييم الموت الخلوي المبرمج.داستُخدم مقايسة الممتزة المناعية المرتبطة بالإنزيم (ELISA) لقياس مستويات إفراز الإنسولين (المقيسة بمعيار محتوى الإنسولين الكلي داخل الخلايا). تمثل أشرطة الخطأ الانحراف المعياري (SD)، حيث n = 3. ***P < 0.001; **P < 0.01 يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
التحقق من أهداف miR-3619-5p
كشفت تنبؤات المعلوماتية الحيوية عن إجمالي 174 جينًا مستهدفًا عبر أربع قواعد بيانات (الشكل 3A)، ويظهر موقع ارتباط MTA3 درجة عالية من الحفظ (درجة Context++: -0.31؛ مئوية درجة Context++: 98). كما تم تحديد موقع ارتباط مكمل بين miR-3619-5p ومنطقة 3'-UTR لـ MTA3 (الشكل 3B). وأظهرت نتائج اختبار مقايسة لوسيفيراز الثنائية (DLR) أن نشاط اللوسيفيراز النسبي لـ MTA3 WT قد زاد بشكل ملحوظ في مجموعة محاكي miR-3619-5p، مما يشير إلى أن miR-3619-5p يمكنه الارتباط بـ MTA3 (الشكل 3C).
انخفض تعبير MTA3 بشكل ملحوظ في مصل مرضى T2DM (الشكل 3D)؛ كما انخفض تعبيره بشكل كبير في خلايا INS-1 المعالجة بـ HG، بينما أدى محاكي miR-3619-5p إلى زيادة تنظيم تعبير MTA3 (الشكل 3E). وأظهرت نتائج لطخة ويسترن أن محاكي miR-3619-5p زاد من مستويات بروتين MTA3، بينما أدى مثبط miR-3619-5p إلى خفض تعبيره بشكل كبير (الشكل التكميلي 1). وكشف تحليل ارتباط بيرسون عن وجود ارتباط إيجابي معنوي بين مستويات miR-3619-5p وMTA3 في مصل 102 مريضاً يعانون من T2DM (الشكل 3F). وتؤكد هذه النتائج بشكل أكبر الدور التنظيمي الإيجابي لـ miR-3619-5p على MTA3.
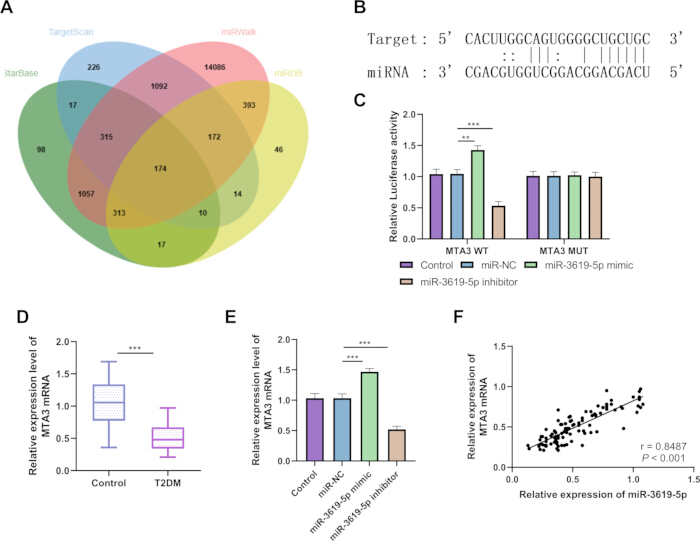
الشكل 3: التحقق من أهداف miR-3619-5p. (A) الجينات المستهدفة المشتركة لـ miR-3619-5p والتي تم تحديدها في أربع قواعد بيانات: TargetScan وmiRWalk وStarBase وmiRDB. (B) موقع ارتباط miR-3619-5p بالمنطقة 3’-UTR لـ MTA3. (C) مقايسة DLR (العدد n = 3). (D) تحليل RT-qPCR للتعبير عن MTA3 في مصل المرضى المصابين بـ T2DM (المجموعة الضابطة Control، العدد n = 80؛ ومجموعة T2DM، العدد n = 102). (E) تحليل RT-qPCR للتعبير عن MTA3 في الخلايا (العدد n = 3). (F) تحليل ارتباط بيرسون (Pearson correlation) للتعبير عن miR-3619-5p وMTA3 في مصل المرضى المصابين بـ T2DM (المجموعة الضابطة Control، العدد n = 80؛ ومجموعة T2DM، العدد n = 102). تمثل أشرطة الخطأ الانحراف المعياري (SD). ***P < 0.001؛ **P < 0.01 يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تأثيرات MTA3 على البنكرياس βوظيفة الخلية
أظهرت النتائج أن si-MTA3 قلل بشكل أكبر من تعبير MTA3 بعد المعالجة بـ HG، بينما أدى التعديل الوراثي المشترك باستخدام محاكي miR-3619-5p إلى عكس هذا التأثير (الشكل 4A). كما أدى si-MTA3 إلى تثبيط إضافي لتكاثر الخلايا المعالجة بـ HG، وتحفيز موت الخلايا المبرمج، وتفاقم ضعف إفراز الإنسولين؛ في حين أن التعديل الوراثي المشترك باستخدام محاكي miR-3619-5p عكس الأنماط الظاهرية الخلوية المذكورة سابقاً والتي توسطها si-MTA3، مما أدى إلى استعادة تكاثر الخلايا، وتقليل موت الخلايا المبرمج، وتخفيف تثبيط إفراز الإنسولين (الشكل 4B–D).
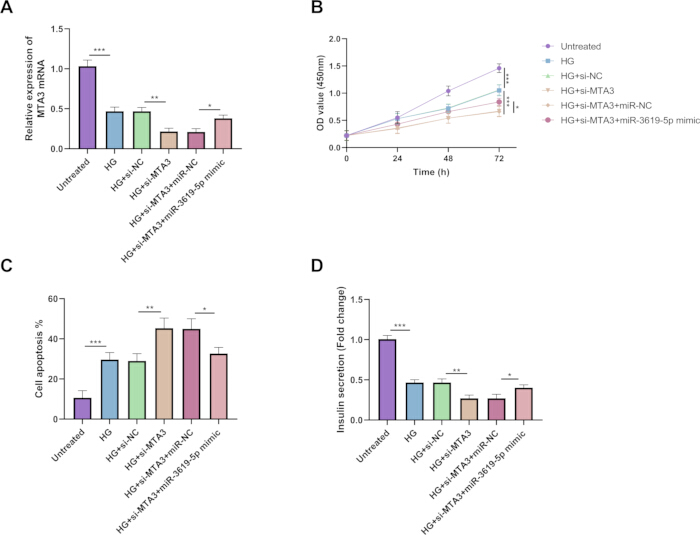
الشكل 4تأثير MTA3 على البنكرياس βوظيفة الخلية. تم ترانسفكشن (transfection) كل من si-MTA3 ومحاكي miR-3619-5p في الخلايا لإجراء مزيد من الاستقصاء حول تأثير MTA3 على البنكرياس βوظيفة الخلية. (Aتحليل RT-qPCR للتعبير عن MTA3 في الخلايا.Bتَم تقييم تكاثر الخلايا باستخدام مقايسة CCK-8.سيتم تحديد معدل الموت الخلوي المبرمج عن طريق قياس التدفق الخلوي.دقاس اختبار الممتز المائي المرتبط بالإنزيم (ELISA) مستويات إفراز الأنسولين (التي تم تطبيعها وفقاً لمحتوى الأنسولين الكلي داخل الخلايا). وتمثل أشرطة الخطأ الانحراف المعياري (SD)، حيث n = 3. ***P < 0.001; **P < 0.01; *P < 0.05 يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
باختصار، تظهر النتائج المستخلصة من العينات السريرية أن تعبير miR-3619-5p في المصل ينخفض بشكل ملحوظ لدى المرضى المصابين بـ T2DM، وأن هناك ارتباطاً وثيقاً بين miR-3619-5p وكل من FBG وHbA1c؛ كما أكدت التجارب الخلوية أن miR-3619-5p يمكنه تنظيم MTA3 بشكل محدد، مما يؤثر بالتالي على حيوية ووظيفة إفراز الإنسولين في خلايا β البنكرياسية من جرذان INS-1. وبالنظر إلى هذه النتائج مجتمعة، يبدو أن miR-3619-5p يشارك في تنظيم وظيفة خلايا β البنكرياسية، وهو ما يحقق بشكل أولي الهدف البحثي لهذه الدراسة المتمثل في استقصاء دور miR-3619-5p في مرض السكري من النوع الثاني وآليات تنظيمه المحتملة.
توافر البيانات:
تم رفع جميع مجموعات البيانات الخام والمعالجة التي تدعم استنتاجات هذه الدراسة كـ الملف التكميلي 1.
| المؤشرات | مجموعة الضبط (العدد = 80) | مجموعة مرض السكري من النوع الثاني (العدد = 102) | القيمة الاحتمالية (P value) |
| العمر (سنوات) | 51.41 ± 9.70 | 52.29 ± 7.03 | 0.478 |
| الجنس (ذكر/أنثى) | 43/37 | 54/48 | 0.914 |
| مؤشر كتلة الجسم (كجم/م²)2) | 24.04 ± 3.10 | 24.81 ± 3.04 | 0.093 |
| الكوليسترول الكلي (مليمول/لتر) | 4.60 ± 0.64 | 4.78 ± 0.65 | 0.068 |
| الدهون الثلاثية (مليمول/لتر) | 1.61 ± 0.18 | 1.67 ± 0.26 | 0.093 |
| كوليسترول البروتين الدهني عالي الكثافة (مليمول/لتر) | 1.43 ± 0.13 | 1.38 ± 0.18 | 0.085 |
| كوليسترول LDL-C (ملي مول/لتر) | 2.55 ± 0.29 | 2.63 ± 0.31 | 0.067 |
| سكر الدم الصائم (مليمول/لتر) | 4.96 ± 0.97 | 7.16 ± 1.64 | <0.001 |
| الهيموجلوبين السكري (٪) | 4.42 ± 0.49 | 6.77 ± 1.16 | <0.001 |
الجدول 1: مقارنة المعايير السريرية بين الأشخاص الخاضعين للدراسة. T2DM، داء السكري من النوع 2؛ BMI، مؤشر كتلة الجسم؛ TC، الكوليسترول الكلي؛ TG، الدهون الثلاثية؛ HDL، البروتينات الدهنية عالية الكثافة؛ LDL، البروتينات الدهنية منخفضة الكثافة؛ FBG، جلوكوز الدم الصيام؛ HbA1c، الهيموجلوبين السكري.
الجدول التكميلي 1: تسلسلات البادئات والكواشف المستخدمة في هذه الدراسة.يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 1: التعبير البروتيني لـ MTA3. تحليل لطخة ويسترن لمستويات بروتين MTA3. (أ) مستويات بروتين MTA3. (ب) صور لطخة ويسترن الأصلية لـ MTA3. (ج) صور لطخة ويسترن الأصلية لـ GAPDH. تمثل أشرطة الخطأ الانحراف المعياري (SD)، n = 3. ***P < 0.001; **P < 0.01يرجى النقر هنا لتنزيل هذا الملف.
الملف التكميلي 1: البيانات الخام.يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
تتمثل السمات المرضية الجوهرية لداء السكري من النوع الثاني (T2DM) في مقاومة الإنسولين وخلل وظائف خلايا بيتا (β-cell) البنكرياسية، حيث تكمن المحركات الرئيسية لإفراز الإنسولين غير الطبيعي والدوافع الأساسية لتطور المرض في انخفاض القدرة التكاثرية وتناقص أعداد خلايا بيتا البنكرياسية26. لذا، فإن تحديد الجزيئات الرئيسية التي يمكنها تنظيم تكاثر خلايا بيتا البنكرياسية وتحسين وظائفها يكتسي أهمية بالغة في التشخيص الدقيق والعلاج لداء السكري من النوع الثاني (T2DM).
باعتبارها جزيئات تنظيمية رئيسية للتعبير الجيني، تؤدي miRNAs وظيفة بالغة الأهمية في البنكرياس β-تكاثر الخلايا، والموت الخلوي المبرمج، وإفراز الإنسولين. وترتبط العديد من جزيئات الـ miRNAs ارتباطًا وثيقًا بالنشوء المرضي لمرض السكري من النوع الثاني (T2DM)27,28,29وجد سونج وآخرون أن تثبيط miR-3619-5p يمنع هجرة الخلايا في سرطان القولون والمستقيم.30وقد وجدت دراسات أخرى أن miR-3619-5p ينخفض تعبيره لدى مرضى السكري الذين يخضعون لغسيل الكلى البريتوني.31ومع ذلك، لم يتم الإبلاغ بعد عن دور وآليات miR-3619-5p في مرض السكري من النوع الثاني (T2DM). وقد وجدت هذه الدراسة أن تعبير miR-3619-5p في مصل المرضى المصابين بمرض السكري من النوع الثاني كان أقل بكثير مقارنة بمجموعة الضبط السليمة، وهو ما يتفق مع النتائج التي توصل إليها Costa وآخرون.31، مما يشير إلى أن انخفاض تعبير miR-3619-5p قد يكون مرتبطاً ارتباطاً وثيقاً ببداية وتطور داء السكري من النوع الثاني (T2DM). وأشار تحليل الارتباط إلى وجود ارتباط سلبي بين تعبير miR-3619-5p وكل من سكر الدم الصائم (FBG) والهيموجلوبين السكري (HbA1c)، مما يدل على أن انخفاض تعبير miR-3619-5p يرتبط بضعف السيطرة على مستوى الجلوكوز لدى المرضى. وهذا يؤكد كذلك أن miR-3619-5p قد يكون متورطاً في عملية الخلل في التنظيم الأيضي لداء السكري من النوع الثاني، وأن مستوى تعبيره قد يعكس شدة المرض؛ وهذا يتفق مع نتائج دراسة Chen et al.، التي أفادت بأن جزيئات الـ RNA ذات التعبير المتباين قد تكون مشتركة في استقلاب الدهون، وإفراز الأنسولين، وتنظيم الجلوكوز.32تشير النتائج المستخلصة من تحليل منحنى خصائص تشغيل المستقبل (ROC curve) إلى إمكانية استخدامه كعلامة حيوية لتشخيص داء السكري من النوع الثاني، مما يعوض نقص الحساسية في التشخيص المبكر المرتبط بمؤشرات جلوكوز الدم التقليدية.
يعد الانخفاض غير الطبيعي في القدرة التكاثرية لخلايا بيتا (β-cell) في البنكرياس مكوناً مركزياً في فشل جزر البنكرياس في مرض السكري من النوع الثاني (T2DM)؛ لذا فإن تعزيز تكاثر خلايا بيتا في البنكرياس وزيادة عدد الخلايا يعد أمراً أساسياً لتحسين وظيفة إفراز الإنسولين33,34. وقد أثبتت هذه الدراسة من خلال التجارب الخلوية أن miR-3619-5p يعزز بشكل ملحوظ تكاثر خلايا INS-1 ويثبط موت الخلايا المبرمج (apoptosis)، مما يؤدي إلى زيادة إفراز الإنسولين. يشير هذا إلى أن miR-3619-5p قد يحسن وظيفة إفراز الإنسولين عن طريق تعزيز تكاثر خلايا بيتا في البنكرياس وتثبيط موت الخلايا المبرمج، وبذلك يشارك في الآلية المرضية لمرض السكري من النوع الثاني (T2DM). وهذا يتفق مع الآليات التنظيمية لـ miRNAs في تكاثر خلايا بيتا في البنكرياس الموصوفة في دراسات سابقة، مثل miR-26a-5p وmiR-765، اللذين يعززان تكاثر وتمايز خلايا بيتا في البنكرياس عن طريق تنظيم تعبير الجينات المستهدفة35,36.
استخدمت هذه الدراسة تنبؤات المعلوماتية الحيوية ومقايسات DLR للتأكيد على أن MTA3 هو جين مستهدف لـ miR-3619-5p. وبصفته بروتيناً مرتبطاً بالنقائل، يشارك MTA3 بشكل واسع في عمليات فسيولوجية رئيسية مثل تكاثر الخلايا، والموت الخلوي المبرمج، والتمثيل الغذائي20. وقد وجدت الأبحاث أن MTA3 يشارك في تنظيم تليف الكبد الناجم عن ارتفاع مستويات الجلوكوز24. كما يرتبط كبت MTA3 الناتج عن مرض السكري من النوع الثاني (T2DM) بزيادة الإجهاد التأكسدي في الخصيتين37. وفي هذه الدراسة، انخفض تعبير MTA3 في الخلايا المعالجة بـ HG. وبالنظر إلى نتائج مقايسات تكاثر الخلايا، يُفترض أن si-MTA3 قد يساهم في إمراضية T2DM عن طريق تثبيط تكاثر خلايا β البنكرياسية، بينما قد يخفف miR-3619-5p من هذا التثبيط عن طريق تنظيم تعبير MTA3، مما يؤدي بالتالي إلى تحسين وظيفة خلايا β البنكرياسية. إن توضيح هذه الآلية يعمل على تدقيق الشبكة الجزيئية لتنظيم miRNA لتكاثر خلايا β البنكرياسية، ويوفر منظوراً جديداً للبحث في إمراضية T2DM.
تتمتع نتائج هذه الدراسة بقيمة سريرية وترجمية محتملة. إذ يمكن الكشف عن miR-3619-5p في مصل الدم الوريدي الطرفي؛ وفي حال تم التحقق من ذلك في دراسات لاحقة على مجموعات كبيرة، فإنه يمثل علامة بيولوجية مساعدة واعدة لمساعدة الأطباء في تحديد الأفراد المعرضين لخطر خلل وظائف خلايا β البنكرياسية، مما يتيح تصنيف المخاطر في مرحلة مبكرة. يمكن لـ miR-3619-5p أن يخفف من الضرر الناجم عن فرط سكر الدم في خلايا β البنكرياسية عن طريق استهداف وتنظيم مسار MTA3 للحفاظ على بقاء خلايا β وإفراز الإنسولين. يشير هذا إلى أن محور miR-3619-5p/MTA3 يمتلك القدرة على أن يكون هدفاً جديداً لحماية الجزر البنكرياسية في مرض السكري، مما يوفر رؤى تجريبية أساسية للتطوير اللاحق لأدوية قائمة على الأحماض النووية أو مثبطات الجزيئات الصغيرة لحماية وظيفة الجزر البنكرياسية.
يجب ملاحظة العديد من القيود في الدراسة الحالية: أولاً، أُجري بحثنا في مركز واحد؛ وقد يكون هناك انحياز في الاختيار، كما أن التباين بين الأفراد من المشاركين محدود نسبياً. لذا، ينبغي أن تتوسع الدراسات المستقبلية في حجم العينة وإجراء دراسات متعددة المراكز للتحقق من ملف التعبير والقيمة السريرية لـ miR‑3619‑5p. ثانياً، أثبتت هذه الدراسة الوظيفة التنظيمية لـ miR-3619-5p في البنكرياس β-تكاثر الخلايا على المستوى الخلوي فقط، ولم يتم إجراء مزيد من التحقق من خلال تجارب على الحيوانات. لذا، يجب أن تعمل الدراسات المستقبلية على إنشاء نموذج حيواني لمرض السكري من النوع الثاني (T2DM) لاستكشاف آليات عمله في الجسم الحي (in vivo) بشكل أكبر. ثالثاً، تظهر جزيئات miRNAs بشكل عام خصائص متعددة الوظائف، وقد يقوم miR-3619-5p أيضاً بتنظيم مجموعة متنوعة من الجينات ذات الصلة. وفي الوقت ذاته، تخضع أنظمة ترانسفكشن (transfection) في المختبر التي تستخدم محاكيات miRNA أو مثبطاته لتأثيرات محتملة خارج الهدف (off-target effects)؛ إذ قد يؤدي التدخل الاصطناعي بجرعات عالية إلى تنشيط أو تثبيط مسارات إشارات متعددة بشكل غير نوعي، مما يجعل من الصعب محاكاة نمط العمل الملاحظ في الظروف الفسيولوجية بشكل كامل. تتطلب الأبحاث المستقبلية إجراء مسح شامل للأهداف في كامل النسخ (whole-transcriptome) للتمييز بين التنظيم المستهدف النوعي والآثار البيولوجية غير النوعية الناتجة عن التأثيرات خارج الهدف. رابعاً، بينما استخدمت هذه الدراسة تدخلاً بتركيز 25 ملي مولار من الغلوكوز في نموذج الغلوكوز المرتفع في المختبر، لم يتم إنشاء مجموعة ضابطة أسموزية باستخدام المانيتول؛ وبناءً على ذلك، لم يكن من الممكن التمييز بشكل كامل بين التأثيرات الأيضية النوعية للغلوكوز وتلك الناتجة عن الإجهاد الأسموزي. يجب أن تتضمن التجارب المستقبلية ضابطاً أسموزياً لمزيد من التوضيح للآلية التي تؤثر بها مستويات الغلوكوز المرتفعة على خلايا INS-1. وأخيراً، هناك عدم تطابق في الأنواع بين العينات السريرية ونماذج الخلايا في المختبر؛ ورغم أن خلايا INS-1 تعد نموذجاً كلاسيكياً في المختبر لدراسة النضج الوظيفي للبنكرياس β-الخلايا، فلا يمكن مساواة الآليات التنظيمية الملحوظة في خلايا الجرذان مباشرة بالعمليات البيولوجية الفعلية لدى البشر. لذا، يجب توخي الحذر عند تفسير العلاقة التنظيمية بين miR-3619-5p وMTA3 التي تم تحديدها على المستوى الخلوي في المختبر في هذه الدراسة من أجل التطبيقات السريرية. وستحتاج الدراسات المستقبلية إلى استخدام خلايا بنكرياسية بشرية βنماذج خلوية أو جزر بنكرياسية بشرية أولية لمزيد من التحقق من الحفاظ على هذا المسار عبر الأنواع.
ينخفض تعبير miR-3619-5p في المصل والبنكرياس β-خلايا المرضى المصابين بداء السكري من النوع الثاني؛ ومن خلال استهداف MTA3، يمكن لـ miR-3619-5p أن يخفف من تضرر البنكرياس الناجم عن فرط سكر الدم βخلل في وظائف الخلايا، تعزيز البنكرياس β-تكاثر الخلايا، وتثبيط الموت الخلوي المبرمج، وتحسين إفراز الإنسولين. تشير هذه الدراسة إلى أن miR-3619-5p قد يكون مفيداً في المساعدة على تصنيف مخاطر السكري، وأن محور miR-3619-5p/MTA3 يمثل هدفاً محتملاً لحماية الجزر الكنكرياسية. وفي المستقبل، سنقوم بإجراء دراسة أترابية على نطاق أوسع للتحقق من قيمتها السريرية، وإجراء تحقق وظيفي في الجسم الحي باستخدام نماذج حيوانية مصابة بالسكري؛ وفي الوقت ذاته، سنقوم بإجراء تحليل متعمق لمسارات الإشارات المصبة لـ MTA3 التي تتوسط التغيرات في وظيفة الجزر الكنكرياسية، ومواصلة تقييم الإمكانات الانتقالية لهذا الهدف في علاج حماية الجزر الكنكرياسية.
الإفصاحات
يصرح المؤلفون بأنه لا توجد لديهم أي مصالح مالية أو غير مالية ذات صلة للإفصاح عنها.
شكر وتقدير
تم دعم هذه الدراسة من قبل استراتيجيات الوقاية للمرضى الذين يعانون من داء السكري وعدوى المسالك البولية (رقم MSZ2025119).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| Annexin V-FITC/PI Apoptosis Detection Kit | Roche, Switzerland | 11684795910 | تلوين بـ Annexin V-FITC (10 µL) و PI (5 µL)؛ حضانة لمدة 15 min في الظلام |
| Cell Counting Kit-8 (CCK-8) | Dojindo, Japan | CK04 | مقايسة لونية لقياس حيوية الخلايا؛ 10 µL لكل بئر، حضانة لمدة 2 h، قياس OD450 |
| D-Glucose | Sigma-Aldrich | G7021 | يُضاف إلى وسط الزرع بتركيز 25 mM لإنشاء نموذج تلف خلوي مستحث بالجلوكوز العالي (HG) |
| Dual-Luciferase Reporter Assay System | Promega, USA | E1910 | قياس متسلسل لأنشطة لوسيفيراز اليراعة (firefly) ولوسيفيراز رينيلا (Renilla) |
| Fetal bovine serum (FBS) | Gibco, USA | 10437028 | مكمل بتركيز نهائي 10% |
| Flow cytometer | Beckman Coulter, USA | CytoFLEX | تحليل قياس التدفق الخلوي لحساب معدل الموت الخلوي المبرمج |
| GAPDH antibody | Abcam, UK | ab181602 | لطخة ويسترن |
| GAPDH primers | Sangon Biotech, China | Custom synthesis | جين تدبير منزلي لمعايرة mRNA |
| Goat Anti-Rabbit IgG H&L (HRP) | Abcam, UK | ab6721 | لطخة ويسترن |
| HEK293T cell line | ATCC, USA | CRL-3216 | خلايا كلوية جنينية بشرية؛ كفاءة ترانسفكشن عالية لمقاييس اللوسيفيراز |
| INS-1 cell line | Sunncell, China | SNL-332 | خط خلايا ورم إنسوليني جرذان؛ تُزرع في RPMI 1640 مع 10% FBS و 1% penicillin-streptomycin |
| LightCycler 480 II Real-Time PCR System | Roche, Switzerland | 5015278001 | تضخيم PCR في الوقت الحقيقي؛ بتنسيق لوحة 96 بئراً أو 384 بئراً |
| Lipofectamine 3000 | Invitrogen, USA | L3000001 | كاشف ترانسفكشن قائم على الدهون |
| Microplate reader | BioTek, Agilent | Synergy H1 | قياس الامتصاصية؛ تُستنبط تركيزات العينات من منحنيات قياسية |
| miR-3619-5p inhibitors | RiboBio, China | miR20017999-1-5 | RNA أحادي السلسلة مصنع كيميائياً لتثبيط وظيفة miR-3619-5p |
| miR-3619-5p mimics | RiboBio, China | miR10017999-1-5 | RNA مزدوج السلسلة مصنع كيميائياً للإفراط في تعبير miR-3619-5p |
| miR-3619-5p primers | Sangon Biotech, China | Custom synthesis | بادئات محددة للكشف عن miR-3619-5p |
| miR-NC (miRNA blank control) | RiboBio, China | miR2N0000001-1-5 | ضابط سلبي غير مستهدف لتجارب محاكيات/مثبطات miRNA |
| miRNeasy Mini Kit | Qiagen, Germany | 217004 | استخلاص RNA الكلي من عينات الخلايا |
| miScript II RT Kit | Qiagen, Germany | 218160 | نسخ عكسي لـ miRNA؛ يستخدم إضافة ذيل poly(A) وبادئة oligo-dT |
| miScript SYBR Green PCR Kit | Qiagen, Germany | 218073 | qPCR قائم على SYBR Green للكشف عن miRNA |
| MTA3 antibody | Invitrogen, USA | PA5-100022 | لطخة ويسترن |
| MTA3 primers | Sangon Biotech, China | Custom synthesis | بادئات محددة للكشف عن mRNA الخاص بـ MTA3 |
| NanoDrop 2000 spectrophotometer | Thermo Fisher Scientific, USA | ND-2000 | تقييم تركيز ونقاوة RNA |
| Penicillin-Streptomycin | Gibco, USA | 15140122 | محلول مضاد حيوي بتركيز 1% لمنع التلوث البكتيري |
| pmirGLO Dual-Luciferase miRNA Target Expression Vector | Promega, USA | E1330 | ناقل تقرير لوسيفيراز مزدوج للتحقق من هدف miRNA؛ يحتوي على جينات لوسيفيراز اليراعة ورينيلا |
| PrimeScript RT Reagent Kit with gDNA Eraser | TaKaRa, Japan | RR047A | نسخ عكسي مع خطوة إزالة DNA الجينومي |
| Rat Insulin ELISA Kit | Invitrogen, USA | ERINS | كشف كمي للإنسولين المفرز من خلايا INS-1 في وسط الزرع |
| RPMI 1640 medium | Gibco, USA | 11875093 | وسط زرع أساسي؛ مُكمل بـ 10% FBS و 1% penicillin-streptomycin |
| si-MTA3 | RiboBio, China | siB170209084646-1-5 | RNA متداخل صغير يستهدف MTA3 لإسكات الجين |
| si-NC (blank control for siRNA) | RiboBio, China | siB06525141922-1-5 | ضابط siRNA غير مستهدف |
| SYBR Green Master PCR Mix | TaKaRa, Japan | RR820A | تضخيم qPCR قائم على SYBR Green |
| TRIzol Reagent | Invitrogen, USA | 15596026 | استخلاص RNA الكلي من عينات المصل |
| U6 primers | Sangon Biotech, China | Custom synthesis | مرجع داخلي لمعايرة miRNA |
المراجع
- Wang L, et al. Associated factors and principal pathophysiological mechanisms of type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2025;16:1499565.
- Wan Z, et al. The role of systemic inflammation in the association between serum 25-hydroxyvitamin D and type 2 diabetes mellitus. Clin Nutr. 2021;40(6):3661–7.
- Okamoto A, et al. Efficacy and safety of semaglutide in glycemic control, body weight management, lipid profiles and other biomarkers among obese type 2 diabetes patients initiated or switched to semaglutide from other GLP-1 receptor agonists. J Diabetes Metab Disord. 2021;20(2):2121–8.
- Aguayo-Mazzucato C, et al. β Cell Aging Markers Have Heterogeneous Distribution and Are Induced by Insulin Resistance. Cell Metab. 2017;25(4):898–910.e5.
- Goshrani A, Lin R, O'Neal D, Ekinci EI. Time in range-A new gold standard in type 2 diabetes research Diabetes Obes Metab. 2025;27(5):2342–62.
- Niu F, et al. β-cell neogenesis: A rising star to rescue diabetes mellitus. J Adv Res. 2024;62:71–89.
- Zhang Y, et al. THADA inhibition in mice protects against type 2 diabetes mellitus by improving pancreatic β-cell function and preserving β-cell mass. Nat Commun. 2023;14(1):1020.
- Ho PTB, Clark IM, Le LTT. MicroRNA-Based Diagnosis and Therapy. Int J Mol Sci. 2022;23(13).
- Poy MN, et al. A pancreatic islet-specific microRNA regulates insulin secretion. Nature. 2004;432(7014):226–30.
- Karagiannopoulos A, Cowan E, Eliasson L. miRNAs in the Beta Cell-Friends or Foes Endocrinology. 2023;164(5).
- Hu H, et al. Plasma miR-193b-3p Is Elevated in Type 2 Diabetes and Could Impair Glucose Metabolism. Front Endocrinol (Lausanne). 2022;13:814347.
- Benko J, et al. MiR-126 and miR-146a as markers of type 2 diabetes mellitus: a pilot study. Bratisl Lek Listy. 2023;124(7):527–33.
- Liu C, Gao Y, Wu J, Zou J. Exosomal miR-23a and miR-192, Potential Diagnostic Biomarkers for Type 2 Diabetes. Clin Lab. 2021;67(2).
- Liu Y, Li J, Wang S, Song H, Yu T. STAT4-mediated down-regulation of miR-3619-5p facilitates stomach adenocarcinoma by modulating TBC1D10B. Cancer Biol Ther. 2020;21(7):656–64.
- Ma J, et al. M2 macrophage facilitated angiogenesis in cutaneous squamous cell carcinoma via circ_TNFRSF21/miR-3619-5p/ROCK axis. Kaohsiung J Med Sci. 2022;38(8):761–71.
- Zhang M, Luo H, Hui L. MiR-3619-5p hampers proliferation and cisplatin resistance in cutaneous squamous-cell carcinoma via KPNA4. Biochem Biophys Res Commun. 2019;513(2):419–25.
- Ge L, Tan W, Li G, Gong N, Zhou L. Circ_0026134 promotes NSCLC progression by the miR-3619-5p/CHAF1B axis. Thorac Cancer. 2022;13(4):582–92.
- Sun Z, Li X, Shi Y, Yao Y. LncRNA PVT1 facilitates the growth and metastasis of colorectal cancer by sponging with miR-3619-5p to regulate TRIM29 expression. Cancer Rep (Hoboken). 2024;7(6):e2085.
- Wu C, et al. Long Noncoding RNA Plasmacytoma Variant Translocation 1 Regulates Cisplatin Resistance via miR-3619-5p/TBL1XR1 Axis in Gastric Cancer. Cancer Biother Radiopharm. 2020;35(10):741–52.
- Tang Y, et al. Mechanisms of MTA3 in cancer and related diseases and its clinical applications. Front Oncol. 2025;15:1731799.
- Lau P, et al. Sphingosine kinase 1 promotes tumor immune evasion by regulating the MTA3-PD-L1 axis. Cell Mol Immunol. 2022;19(10):1153–67.
- Du L, et al. MTA3 Represses Cancer Stemness by Targeting the SOX2OT/SOX2 Axis. iScience. 2019;22:353–68.
- Liu Y, et al. Discovery of Jaspamycin from marine-derived natural product based on MTA3 to inhibit hepatocellular carcinoma progression. Sci Rep. 2024;14(1):25294.
- Li Q, et al. High glucose promotes hepatic fibrosis via miR‑32/MTA3‑mediated epithelial‑to‑mesenchymal transition. Mol Med Rep. 2019;19(4):3190–200.
- Pu M, Kong L, Li J, Su L, Chen Y. LncRNA NBR2 affects pancreatic β-cell function in type 2 diabetes mellitus by targeting miR-646. Diabetol Metab Syndr. 2025;17(1):454.
- Galicia-Garcia U, et al. Pathophysiology of Type 2 Diabetes Mellitus. Int J Mol Sci. 2020;21(17).
- Wang J, et al. Extracellular vesicles mediate the communication of adipose tissue with brain and promote cognitive impairment associated with insulin resistance. Cell Metab. 2022;34(9):1264–79.e8.
- Rosado JA, Diez-Bello R, Salido GM, Jardin I. Fine-tuning of microRNAs in Type 2 Diabetes Mellitus. Curr Med Chem. 2019;26(22):4102–18.
- Taheri M, Eghtedarian R, Ghafouri-Fard S, Omrani MD. Non-coding RNAs and type 2 diabetes mellitus. Arch Physiol Biochem. 2023;129(2):526–35.
- Song B, et al. LINC00882 Plays a Tumor-promoter Role in Colorectal Cancer by Targeting miR-3619-5p to Up-regulate CTNNB1. Arch Med Res. 2022;53(1):29–36.
- Costa NA, et al. Peritoneal dialysis influences microRNA expression and pro-inflammatory response: results from a cross-sectional study. J Bras Nefrol. 2026;48(1):e20240218.
- Chen J, et al. Identification of the LncRNA PRNCR1/miR-642a-5p/SSTR3 CeRNA network and its diagnostic value in type 2 diabetes mellitus. Diabetol Metab Syndr. 2025;18(1):39.
- Elizabeth MM, et al. Pancreatic β-Cells and Type 2 Diabetes Development. Curr Diabetes Rev. 2017;13(2):108–21.
- Kerper N, Ashe S, Hebrok M. Pancreatic β-Cell Development and Regeneration. Cold Spring Harb Perspect Biol. 2022;14(5).
- Yang F, Zhao S, Zhang X, Ding S, Xu Y. RNF6 Targeted by miR-26a-5p Protects Pancreatic β-Cell Function Against Type 2 Diabetes. Diabetes Metab Syndr Obes. 2022;15:93–102.
- Zheng L, et al. miR-765 targeting PDX1 impairs pancreatic β-cell function to induce type 2 diabetes. Arch Physiol Biochem. 2023;129(6):1279–88.
- Liu F, et al. T2DM-elicited oxidative stress represses MTA3 expression in mouse Leydig cells. Reproduction. 2022;163(5):267–80.