يقدم هذا البروتوكول طريقة لإنتاج عضوانيات وعائية باستخدام خلايا جذعية بشرية مستحثة متعددة القدرات.
مقالة منهجية
بروتوكول مُحسَّن لتوليد العضويات الوعائية من الخلايا الجذعية البشرية المستحثة متعددة القدرات
في هذه المقالة
ملخص
الملخص
برزت العضوانيات الوعائية المشتقة من الخلايا الجذعية البشرية متعددة القدرات (hPSCs) كنماذج ثلاثية الأبعاد قوية لدراسة التطور الوعائي، وآليات المرض، والاستجابات الدوائية. تتيح البروتوكولات الحالية للعضوانيات الوعائية توليد شبكات من الخلايا البطانية والخلايا الحولية ذاتية التنظيم؛ ومع ذلك، فإن التباين بين الدفعات، وعدم اتساق تكوين العضوانيات، والتغطية غير الكافية للخلايا الحولية يمكن أن يؤثر سلباً على قابلية التكرار وقابلية التوسع. تقدم هذه الدراسة بروتوكولاً مُحسناً لتوليد عضوانيات وعائية من الخلايا الجذعية البشرية المستحثة متعددة القدرات (hiPSCs) مع تحسين قابلية التكرار والاتساق الهيكلي. تشمل التعديلات الرئيسية تحسين ظروف تكوين الأجسام الجنينية، وتحسين تركيزات عوامل النمو وتوقيتها أثناء تحريض الأديم المتوسط والتخصيص الوعائي، وتحسين ظروف الزراعة ثلاثية الأبعاد التي تعزز تجنيد الخلايا الحولية والتفاعلات بين الخلايا البطانية والحولية. تظهر العضوانيات المُحسنة شبكات بطانية موجبة لـ CD31 عالية التفرع ومغلفة باستمرار بخلايا حولية موجبة لـ PDGFR-β، مع تقليل ملحوظ في التباين بين الدفعات مقارنة بالبروتوكول الأصلي. يتم توفير إجراءات مفصلة خطوة بخطوة لتوليد العضوانيات، وتوصيف الفلورة المناعية للحمل الكامل، وتقييم مراقبة الجودة. تتيح هذه الطريقة المُحسنة إنتاجاً قابلاً للتوسع لعضوانيات وعائية عالية الجودة مناسبة لدراسة التفاعلات بين الخلايا الوعائية، ونمذجة الأمراض، وفحص المركبات، مما يقلل من العوائق التقنية للمختبرات التي تسعى لاعتماد هذا النظام النموذجي.
المقدمة
برزت العضويات ثلاثية الأبعاد (3D organoids) كأدوات قوية لنمذجة تطور الأعضاء البشرية والأمراض in vitro، حيث توفر محاكاة حيوية هيكلية وصلة فيزيولوجية مرضية فائقة مقارنة بنماذج المزارع الخلوية التقليدية ثنائية الأبعاد1,2. وفي السنوات الأخيرة، تم بنجاح إنشاء عضويات مشتقة من الخلايا الجذعية البشرية متعددة القدرات (hPSC) لأنواع متعددة من الأنسجة، بما في ذلك الأمعاء3، والدماغ4,5، والكلى6، والكبد7,8، والشبكية9. ومع ذلك، فإن التحدي الرئيسي في الدراسات القائمة على العضويات هو عدم كفاية التوعية الدموية أثناء الزراعة طويلة الأمد، مما قد يؤدي إلى نقص الأكسجة والنخر، وبالتالي إعاقة توسع العضويات وتمايزها10,11. ولمعالجة هذا القصور، تم تقديم استراتيجيات زراعة مشتركة متنوعة، بما في ذلك دمج الخلايا البطانية أو الخلايا الجذعية الميزنكيمية لتعزيز تكوين الشبكة الوعائية12,13. بيد أن المزارع التقليدية ثنائية الأبعاد والنماذج الحيوانية لا تحاكي بيولوجيا الأوعية الدموية البشرية بشكل كامل، بينما تفرض مناهج الزراعة المشتركة تعقيداً تجريبياً إضافياً14. لذا، فإن العضويات الوعائية القادرة على التوعية الذاتية توفر بديلاً واعداً ذا صلة بالبشر15.
يتضمن تكوين الشبكة الوعائية كلاً من تكوين الأوعية الدموية (vasculogenesis) وتكون الأوعية الدموية (angiogenesis)، واللذين يتم تنسيقهما من خلال التفاعلات بين الخلايا البطانية والخلايا الجدارية، مثل الخلايا الحولية وخلايا العضلات الملساء الوعائية، ويتم تنظيمهما بدقة بواسطة جزيئات إشارات متعددة، بما في ذلك VEGF (عامل نمو البطانة الوعائية)، وTGF-β (عامل النمو التحويلي-β)، وPDGF (عامل النمو المشتق من الصفائح الدموية)، والأنغيوپويتينات16. في عام 2019، وضع Wimmer وزملاؤه طريقة لإنتاج عضويات أوعية دموية ثلاثية الأبعاد ذاتية التجميع مباشرة من hPSCs17,18. يقوم هذا النظام بتوليد الخلايا البطانية والخلايا الحولية في وقت واحد، مما ينتج عنه شبكات وعائية دقيقة مع تكوين تجويف وتغطية بالغشاء القاعدي. وبناءً على هذه المنصة، استُخدمت العضويات الوعائية لنمذجة اعتلال الأوعية الدموية السكري تحت تحفيز الجلوكوز العالي والسيتوكينات المحرضة للالتهابات (TNF-α وIL-6)؛ حيث تعيد هذه العضويات محاكاة تسمك الغشاء القاعدي، وهو سمة مميزة لاعتلال الأوعية الدموية الدقيقة السكري17. بالإضافة إلى ذلك، استُخدم هذا النموذج لدراسة الأمراض الوعائية الوراثية وكمنصة لفحص السمية الوعائية19. وفي الآونة الأخيرة، سعت العديد من الدراسات الموجهة نحو المنهجية إلى تحسين إنتاج العضويات الوعائية. على سبيل المثال، حددت التطورات في تسلسل RNA أحادي الخلية عوامل تنظيمية رئيسية، مثل MECOM وLEF1، مما وفر إطاراً جزيئياً لتوصيف وتحسين تكوين العضويات الوعائية البشرية. بالإضافة إلى ذلك، قدم Xu وآخرون الآبار الدقيقة (microwells) لتسهيل تكوين الأجسام الجنينية المتجانسة ودمجوا مزيج CEPT لتحسين حيوية الخلايا، مما أدى إلى تقليل التباين بين الدفعات الإنتاجية بشكل فعال20.
لتحسين التجانس وقابلية التكرار وإنتاجية توليد العضوانيات الوعائية، تم تحسين البروتوكول الأصلي الذي وصفه Wimmer et al.17,18 بشكل منهجي لمعالجة العديد من القيود الرئيسية. أولاً، يعتمد البروتوكول الأصلي على التجمع الطبيعي في أطباق منخفضة الالتصاق لتكوين الأجسام المضغية، مما قد يؤدي إلى تباين كبير بين الدفعات في حجم التجمعات، وبالتالي تفاوت في كفاءة التمايز. وفي البروتوكول المُحسَّن، يتم دمج كحول البولي فينيل (PVA) مع الرج المداري أثناء تكوين التجمعات لتعزيز التجمع الخلوي الموحد وتحسين الاتساق في حجم الأجسام المضغية. ثانياً، يستخدم البروتوكول الأصلي استبدالاً كاملاً للوسط خلال مرحلة تكوين الشبكة الوعائية، وهو ما قد يسبب تقلبات كبيرة في تركيزات عوامل النمو ويؤثر سلباً على استمرارية التبرعم الوعائي وتجنيد الخلايا الحولية. وفي المقابل، يحتفظ البروتوكول المُحسَّن بثلث الوسط المُكيَّف خلال كل عملية تغيير للوسط للحفاظ على عوامل تحفيز تكوين الأوعية الدموية الداخلية وتثبيت بيئة الزرع. ثالثاً، يتطلب البروتوكول الأصلي عمليات نقل متعددة للأطباق أثناء عزل العضوانيات وإنضاجها، مما يزيد من متطلبات المناولة ومخاطر فقدان العضوانيات. ويتجاوز البروتوكول المُحسَّن هذه الخطوات عن طريق نقل العضوانيات المعزولة بشكل فردي إلى آبار أطباق 96 بئراً منخفضة الالتصاق، مما يبسط الإجراء ويزيد من الإنتاجية. وبشكل جماعي، يوفر هذا البروتوكول المُحسَّن إجراءات تفصيلية خطوة بخطوة ونقاط تفتيش حاسمة لمراقبة الجودة لتقليل الحاجز التقني لاعتماد نظام النموذج هذا وتسهيل التطبيق الأوسع للعضوانيات الوعائية في دراسات التطور الوعائي، وآليات المرض، وفحص الأدوية عالي الإنتاجية.
البروتوكول
تمت الموافقة على استخدام الخلايا الجذعية متعددة القدرات البشرية (hPSCs) في هذه الدراسة من قبل لجنة الأخلاقيات الطبية الحيوية بجامعة آنهوي (BECAHU_2026-010).
1. صيانة الخلايا الجذعية البشرية المستحثة متعددة القدرات
ملاحظة: يتم الحفاظ على الخلايا الجذعية البشرية المستحثة متعددة القدرات (hiPSCs) في ظروف خالية من الخلايا المغذية. تُجرى جميع الإجراءات داخل كابينة سلامة بيولوجية من الفئة الثانية (Class II) باستخدام تقنية التعقيم.
- تحضير أطباق الزرع المطلية بمصفوفة الغشاء القاعدي
- أخرج قارورة من مصفوفة الغشاء القاعدي من درجة حرارة −20 °C وأذبها عند 4 °C طوال الليل لمدة تتراوح بين 12 و16 ساعة تقريبًا. تجنب دورات التجميد والذوبان المتكررة.
- امزج مصفوفة الغشاء القاعدي المذابة جيدًا تحت ظروف معقمة وقسمها إلى حصص للاستخدام لمرة واحدة (على سبيل المثال، 1 mL لكل أنبوب). احفظ الحصص عند −20 °C لمدة تصل إلى سنتين.
ملاحظة: حافظ على برودة مصفوفة الغشاء القاعدي والماصات والرؤوس والأنابيب أثناء التعامل معها لمنع التصلب المبكر. تجنب إدخال فقاعات الهواء. - أذب حصة مصفوفة الغشاء القاعدي المطلوبة على الثلج. خفف مصفوفة الغشاء القاعدي بنسبة 1:200 في وسط DMEM مبرد مسبقًا (5 µL من مصفوفة الغشاء القاعدي لكل 1 mL من وسط DMEM؛ التركيز النهائي تقريبًا 5 µg/mL).
- امزج المحلول برفق باستخدام الماصة حتى تختفي جميع الجزيئات المرئية.
- أضف 0.5 mL من مصفوفة الغشاء القاعدي المخففة إلى كل بئر من طبق مكون من 12 بئرًا. قم بإمالة وتدوير الطبق برفق لتغطية كامل السطح السفلي.
- حضن الطبق المطلي عند 37 °C في حاضنة تحتوي على 5% CO₂ لمدة ساعتين على الأقل أو عند 4 °C طوال الليل.
ملاحظة: احفظ الأطباق المطلية المغلقة عند 4 °C لمدة تتراوح من أسبوع إلى أسبوعين. قم بموازنة درجة حرارة الطبق مع درجة حرارة الغرفة واشفط محلول الطلاء مباشرة قبل الاستخدام.
- إذابة الخلايا الجذعية البشرية المستحثة متعددة القدرات (hiPSCs)
- أخرج قارورة مجمّدة من hiPSCs من النيتروجين السائل وضعها فورًا في حمام مائي عند 37 °C. رج القارورة برفق وأخرجها في غضون دقيقة واحدة، عندما لا يتبقى سوى بضع بلورات ثلجية صغيرة.
ملاحظة: تجنب التعرض المطول لـ dimethyl sulfoxide (DMSO) عند 37 °C والإذابة غير الكاملة، حيث يمكن لكليهما أن يقلل من حيوية الخلايا. - عقم الجزء الخارجي من القارورة المجمّدة بإيثانول بتركيز 70% وافتحها داخل كابينة السلامة البيولوجية.
- انقل معلق الخلايا ببطء على شكل قطرات إلى أنبوب مخروطي سعة 15 mL يحتوي على 3 mL من وسط صيانة hPSC المحدد كيميائيًا والمدفأ مسبقًا، أو وسط صيانة مكافئ محدد كيميائيًا. امزج برفق أثناء النقل لتخفيف DMSO تدريجيًا وتقليل الإجهاد الاسموزي.
- قم بЦентrifuge الخلايا عند 300 × g لمدة 3 دقائق في درجة حرارة الغرفة (22–24 °C) باستخدام دوار ذي دلاء متأرجحة.
- اشفط السائل الطافي بعناية دون تعكير كتلة الخلايا. أعد تعليق الكتلة برفق في 1 mL من وسط صيانة hPSC المحدد كيميائيًا والمدفأ مسبقًا.
ملاحظة: استخدم ماصة P1000 وقم بالماصة برفق من 2 إلى 3 مرات لتقليل القص الميكانيكي وتكون الفقاعات.
- أخرج قارورة مجمّدة من hiPSCs من النيتروجين السائل وضعها فورًا في حمام مائي عند 37 °C. رج القارورة برفق وأخرجها في غضون دقيقة واحدة، عندما لا يتبقى سوى بضع بلورات ثلجية صغيرة.
- زراعة واستنبات hiPSCs
- أخرج الطبق المكون من 12 بئرًا والمطلي مسبقًا من الحاضنة واشفط محلول الطلاء. لا تغسل الآبار.
- ازرع ما يقرب من 1 × 10⁵–2 × 10⁵ خلية حية في كل بئر لاستعادة النشاط الروتينية بعد الإذابة. اضبط الكثافة وفقًا لسلالة hiPSC والمتطلبات التجريبية.
- وزع معلق الخلايا ببطء على طول جدار كل بئر دون ملامسة السطح المطلي برأس الماصة.
- أضف Y-27632 بتركيز نهائي قدره 5 µM لتعزيز بقاء الخلايا والتصاقها بعد الإذابة.
ملاحظة: استخدم Y-27632 فقط في وسط الزراعة الأولي. استبدله بوسط صيانة hPSC محدد كيميائيًا وخالٍ من Y-27632 في اليوم التالي. - حضن الخلايا عند 37 °C مع 5% CO₂ ورطوبة مشبعة.
- افحص التصاق الخلايا وشكلها بعد حوالي 16–24 ساعة. اشفط الوسط واستبدله بوسط صيانة hPSC محدد كيميائيًا وطازج ومدفأ مسبقًا وخالٍ من Y-27632.
- استبدل الوسط يوميًا أو كل يومين حتى تصل الخلايا إلى حوالي 70%–80% من درجة التلاقي (confluency) من أجل تمرير الخلايا أو تمايزها.
ملاحظة: افحص المزارع يوميًا. استخدم المستعمرات ذات الحدود المدمجة والمحددة جيدًا، والنسبة النووية السيتوبلازمية العالية، والحد الأدنى من التمايز التلقائي.
2. توليد وتمايز تجمعات الخلايا الجذعية البشرية المستحثة متعددة القدرات (hiPSC)
ملاحظة: يتم الحفاظ على خلايا hiPSCs في ظروف خالية من الخلايا المغذية في وسط صيانة hPSC محدد كيميائياً على أطباق مغلفة بمصفوفة الغشاء القاعدي. يتم تمرير الخلايا كل 4-5 أيام باستخدام 0.02% EDTA. استخدم مزارع ذات كثافة استزراع وحجم مستعمرات مناسبين مع حد أدنى من التمايز التلقائي لزيادة كفاءة التمايز الوعائي.
- تحضير معلق خلوي أحادي
- قم بشفط وسط صيانة الخلايا الجذعية البشرية متعددة القدرات (hPSC) المحددة كيميائياً، واغسل الخلايا الجذعية البشرية المستحثة متعددة القدرات (hiPSCs) باستخدام 0.5 مل من وسط DMEM لكل بئر في طبق مكون من 6 آبار.
- قم بشفط وسط DMEM وأضف 0.5 مل من EDTA بتركيز 0.02% لكل بئر. حضّن العينات في درجة حرارة الغرفة لمدة تتراوح بين 2 إلى 4 دقائق، وراقب الخلايا حتى تبدأ في التحول إلى الشكل الدائري.
- قم بفصل الخلايا باستخدام ماصة P1000. اسحب السائل وأطلقه برفق من 2 إلى 3 مرات لتفكيك التجمعات إلى معلق من الخلايا المفردة.
- أعد تعليق الخلايا في 5 مل من وسط صيانة الخلايا الجذعية البشرية متعددة القدرات (hPSC) المحدد كيميائياً، وانقل المعلق إلى أنبوب مخروطي سعة 15 مل.
- امزج 10 µL من المعلق الخلوي بـ 10 µL من محلول صبغة تريبان الزرقاء (Trypan blue) بتركيز 0.1%. قم بتحميل 10 µL من الخليط على غرفة عد الخلايا وتحديد عدد الخلايا الحية.
- احسب حجم معلق الخلايا المطلوب للحصول على 5 × 10⁵ عدد الخلايا الحية لكل بئر.
- قم بطرد الخلايا مركزياً عند 300 × جـ لمدة 5 دقائق في درجة حرارة الغرفة (22–23 °C) اشفط السائل الطافي.
- أعد تعليق الخلايا في وسط صيانة جديد ومحدد كيميائياً للخلايا الجذعية البشرية متعددة القدرات (hPSC) يحتوي على 50 µM مادة Y-27632 بحجم 3 مل لكل بئر.
- تكوّن التجمعات البروتينية
- أضف 3 مل من معلق الخلايا إلى كل بئر في طبق 6 آبار منخفض الالتصاق. أضف PVA ليصل إلى تركيز نهائي قدره 0.25%.
- ضع الطبق على هزاز مداري بسرعة 50 دورة في الدقيقة، ثم حضنه عند 37 °C لمدة يوم واحد.
- تأكد من تكوين تجمعات ذات حدود ملساء وقطر يبلغ حوالي 50-100 µm أو أكثر قبل المتابعة.
- ملاحظة: قم بتحسين فترة التجميع لكل خط من خطوط الخلايا الجذعية المستحثة متعددة القدرات البشرية (hiPSC) على حدة. قم بتمديد فترة الحضن إلى 2-3 أيام عند الضرورة للحصول على تجمعات بالحجم المطلوب.
- تحفيز الأديم المتوسط
- في اليوم 0، انقل التجمعات إلى أنبوب مخروطي سعة 15 مل باستخدام ماصة معقمة ذات استخدام واحد سعة 10 مل. احتفظ بالطبق الأصلي منخفض الالتصاق لإعادة الزرع.
- اترك التجمعات تترسب بفعل الجاذبية لمدة تتراوح بين 15 و20 دقيقة تقريبًا.
- ملاحظة: تعامل مع التجمعات برفق واستخدم الترسيب بالجاذبية بدلاً من الطرد المركزي لتقليل الضرر الميكانيكي.
- قم بشفط الطافي بعناية بعد ترسب التجمعات.
- أعد تعليق التجمعات في 3 مل لكل بئر من وسط N2B27 المضاف إليه 12 µM CHIR99021 و30 نانوغرام/مل من BMP-4.
- انقل التجمعات مرة أخرى إلى الطبق منخفض الالتصاق واحضنها عند 37 °C.
- قم بسحب التجمعات بلطف بواسطة ماصة P1000 مرة واحدة يومياً لتقليل الاندماج المفرط للتجمعات. استمر في تحفيز طبقة الأديم المتوسط لمدة 3 أيام.
- تحفيز السلالة الوعائية
- في اليوم الثالث، انقل التجمعات إلى أنبوب مخروطي سعة 15 مل واتركها تترسب بفعل الجاذبية. احتفظ بالطبق الأصلي ذي الـ 6 فتحات.
- اسحب السائل الطافي بعناية بعد ترسب التجمعات.
- أعد تعليق التجمعات في 3 مل لكل بئر من وسط N2B27 المدعم بـ 100 نانوجرام/مل من VEGF-A و 2 µM فورسكولين.
- انقل التجمعات مرة أخرى إلى طبق الـ 6 آبار منخفض الالتصاق، وحضنها لمدة يومين إضافيين.
3. توليد الشبكات الوعائية والعضوانيات
- تحضير مصفوفة الكولاجين I والغشاء القاعدي
- اجمع التجمعات المتكونة في طبق واحد بـ 6 آبار لغرض تضمينها في طبق واحد بـ 12 بئرًا. استخدم ما يقرب من 40-60 تجمعًا لكل بئر.
- حضر كمية كافية من خليط مصفوفة الكولاجين I والغشاء القاعدي لإضافة طبقتين بحجم 0.5 mL لكل بئر في الطبق ذي الـ 12 بئرًا.
- حضر 12 mL من المصفوفة للطبق ذي الـ 12 بئرًا الواحد. احتفظ بجميع المكونات على الثلج، وحضر الخليط مباشرة قبل الاستخدام، وتجنب إدخال فقاعات الهواء.
- أضف 0.5 mL من المصفوفة إلى كل بئر في الطبق ذي الـ 12 بئرًا. حرك الطبق بلطف لتوزيع المصفوفة بالتساوي.
- حضن الطبق عند 37 °C لمدة 2 h للسماح لطبقة المصفوفة الأولى بالتصلب.
- تضمين التجمعات
- انقل التجمعات إلى أنبوب مخروطي سعة 15 mL باستخدام ماصة بلاستيكية معقمة سعة 10 mL واتركها تترسب بفعل الجاذبية.
- اشفط السائل الطافي واغسل التجمعات مرتين باستخدام 1 mL من وسط N2B27. تخلص من أكبر قدر ممكن من الوسط المتبقي بعد الغسلة الأخيرة.
- حضر خليطًا جديدًا من مصفوفة الكولاجين I والغشاء القاعدي واحتفظ به على الثلج.
- أعد تعليق التجمعات المغسولة بلطف في المصفوفة المحضرة حديثًا.
- أخرج الطبق ذي الـ 12 بئرًا الذي يحتوي على الطبقة الأولى المتصلبة من الحاضنة.
- أضف 0.5 mL من المصفوفة التي تحتوي على التجمعات إلى كل بئر.
- رج الطبق بلطف لمدة لا تزيد عن 1 min لتوزيع التجمعات بالتساوي.
- حضن الطبق فورًا عند 37 °C لمدة 2 h للسماح للطبقة الثانية بالتصلب.
- تحفيز التبرعم الوعائي
- سخن مسبقًا وسط N2B27 المكمل بـ 15% FBS و 100 ng/mL VEGF-A و 100 ng/mL FGF-2 حتى درجة 37 °C.
- أضف الوسط المكمل المسخن مسبقًا إلى كل بئر لتحفيز التمايز الوعائي.
- راقب المزارع بحثًا عن التبرعم الوعائي خلال الـ 1-3 أيام التالية.
- ملاحظة: سخن الوسط مسبقًا إلى 37 °C قبل إضافته إلى المزارع لتقليل زعزعة استقرار مصفوفة الهلام.
- تغيير الوسط وصيانة المزارع
- قم بإجراء أول تغيير للوسط بعد 3 أيام من التضمين.
- استبدل الوسط كل يومين بعد ذلك باستخدام وسط N2B27 جديد يحتوي على 15% FBS و 100 ng/mL VEGF-A و 100 ng/mL FGF-2.
- احتفظ بثلث الوسط المكيّف أثناء كل عملية تغيير للوسط، واستبدل الثلثين المتبقيين بوسط مكمل جديد.
- باشِر بعملية عزل العضوانيات الوعائية في اليوم العاشر (Day 10).
4. إنشاء العضويات الوعائية والتحضير للتصبيغ
- عزل الشبكات الوعائية الفردية
- أدخل الطرف المستدير لملعقة مختبرية (spatula) معقمة على طول حافة البئر وفصل مصفوفة الهلام بلطف عن القاع.
- استمر في تحريك الملعقة من حافة البئر باتجاه المركز حتى تطفو مصفوفة الهلام بأكملها بحرية.
- استخدم إبرتين معقمتين لاستئصال الشبكات الوعائية الفردية من الهلام. أزل أكبر قدر ممكن من المصفوفة الزائدة دون إتلاف الشبكة الوعائية.
- زراعة العضوانيات المعزولة
- انقل كل عضوانية معزولة مباشرة إلى بئر فردي في طبق 96-well منخفض الالتصاق باستخدام ماصة بلاستيكية معقمة تستخدم لمرة واحدة.
- أضف 100 µL من وسط N2B27 المكمل بـ 15% FBS و 100 ng/mL VEGF-A و 100 ng/mL FGF-2 إلى كل بئر.
- قم بتحضين العضوانيات لمدة 5 أيام إضافية واستبدل الوسط المكمل يومياً.
- تأكد من أن العضوانيات تظهر شكلاً مستديراً ومغلفاً بالكامل بحلول اليوم الخامس من النضج.
- تثبيت العضوانيات الوعائية
- انقل العضوانيات الناضجة شكلياً إلى أنابيب طرد مركزي دقيقة سعة 2 mL. لا تعالج أكثر من 60 عضوانية تقريباً في كل أنبوب.
- اشفط الوسط بعناية وأضف 4% paraformaldehyde (PFA) في PBS.
- ثبت العضوانيات في درجة حرارة الغرفة لمدة 1 h.
تنبيه: مادة PFA سامة ويُشتبه في كونها مادة مسرطنة. تعامل مع PFA داخل خزانة استخلاص كيميائية (fume hood) مع ارتداء معدات الوقاية الشخصية المناسبة. - اشفط PFA واستبدله بـ PBS.
نقطة توقف: يمكن تخزين العضوانيات الوعائية المثبتة في PBS عند 4 °C لمدة تصل إلى شهر واحد.
5. صبغ وتصوير العضوانيات الوعائية باستخدام المجهر البؤري
- الحجب والنفاذية
- أضف 2 mL من محلول الحجب إلى كل أنبوب يحتوي على عضوانيات وعائية مثبتة.
- ضع الأنابيب رأسياً على هزاز مداري واحضنها مع الرج في درجة حرارة الغرفة لمدة 2 h لحجب ونفاذية العضوانيات.
- حضن الجسم المضاد الأولي
- اشفط محلول الحجب وأضف 50–100 µL من الجسم المضاد الأولي المخفف بنسبة 1:100 في محلول الحجب.
- ضع الأنابيب بشكل قائم على هزاز واحضنها مع الرج في درجة حرارة 4 °C طوال الليل.
- الغسيل وحضن الجسم المضاد الثانوي
- اغسل العينات ثلاث مرات باستخدام PBST لمدة 10–15 min لكل غسلة. رج الأنابيب الموضوعة رأسياً أثناء كل غسلة.
- أضف جسماً مضاداً ثانوياً فلورياً مخففاً بنسبة 1:300 في محلول الحجب.
- احضن العينات في درجة حرارة الغرفة لمدة 2 h.
- الصبغ النووي المضاد والغسيل النهائي
- اغسل العينات مرتين باستخدام PBST لمدة 10–15 min لكل غسلة.
- أضف محلول Hoechst مخففاً بنسبة 1:5,000 في PBS واحضنه في درجة حرارة الغرفة لمدة 10–15 min.
- اغسل العينات باستخدام PBS لمدة 10–15 min.
- التصوير البؤري (Confocal imaging)
- انقل العضوانيات المصبوغة إلى أطباق التصوير البؤري.
- التقط صوراً بؤرية باستخدام معاملات تصوير متسقة عبر المجموعات التجريبية.
- التحليل الكمي لصور العضوانيات الوعائية
ملاحظة: أجرِ التحليل الكمي للصور باستخدام Fiji/ImageJ و AngioTool. حافظ على إعدادات التقاط مجهرية متطابقة عبر جميع المجموعات التجريبية.- قياس قطر التجمعات
- التقط صور المجال المضيء لتجمعات hiPSC في اليوم 0 باستخدام مجهر مقلوب بمقياس معاير. قم بتصوير التجمعات المنفصلة جيداً وأضف شريط مقياس.
- استورد كل صورة إلى Fiji/ImageJ. ارسم خطاً على طول شريط المقياس باستخدام أداة Straight Line واختر Analyze > Set Scale.
- أدخل المسافة والوحدة المعروفتين (مثلاً 100 µm) واختر Global لتطبيق المعايرة على جميع الصور في الجلسة.
- ارسم خطاً عبر أوسع قطر لكل تجمع باستخدام أداة Straight Line. اختر Analyze > Measure أو اضغط Ctrl+M وسجل القطر بوحدة µm.
- قس ما لا يقل عن 30 تجمعاً لكل دفعة.
- بالنسبة للتجمعات غير الكروية، حدد مخطط كل تجمع باستخدام أداة Oval أو Polygon Selection. اختر Analyze > Set Measurements > Feret's diameter وسجل القياس.
- صَدّر القياسات من جدول Results وجمع البيانات في جدول بيانات.
- احسب المتوسط، والانحراف المعياري (SD)، ومعامل الاختلاف (CV) حيث CV = SD/mean × 100% لكل دفعة.
- قياس قطر العضوانيات
- التقط صور المجال المضيء للعضوانيات الوعائية الناضجة في اليوم 15 باستخدام مجهر مقلوب بمقياس معاير. أضف شريط مقياس في كل صورة.
- استورد كل صورة إلى Fiji/ImageJ وعاير المقياس كما هو موضح في الخطوة
- ارسم خطاً عبر أوسع قطر لكل عضوانية باستخدام أداة Straight Line. اختر Analyze > Measure أو اضغط Ctrl+M وسجل القطر بوحدة µm.
- قس ما لا يقل عن 30 عضوانية لكل دفعة.
- بالنسبة للعضوانيات غير منتظمة الشكل، قس أطول وأقصر قطر واحسب متوسطهما، أو حدد قطر Feret كما هو موضح في الخطوة 5.6.1.6.
- صَدّر القياسات واحسب المتوسط و SD و CV لكل دفعة.
- تقدير المساحة الوعائية الإيجابية لـ CD31
- التقط صور z-stack بؤرية لعضوانيات كاملة في اليوم 15 مصبوغة لـ CD31. استخدم إعدادات متطابقة لقوة الليزر، والربح (gain)، والإزاحة (offset)، والثقب (pinhole) لجميع العينات.
- أنشئ إسقاطات ذات كثافة قصوى (MIPs) من صور z-stacks باستخدام برنامج المجهر أو Fiji/ImageJ.
- طبق عتبة الكثافة لتجزئة الشبكة الوعائية الإيجابية لـ CD31 مع استبعاد إشارة الخلفية.
- اختر Process > Noise > Remove Outliers واستخدم نصف قطر يتراوح بين 2–5 بكسل لإزالة الشوائب الصغيرة. اختر Process > Binary > Fill Holes لملء الفجوات الصغيرة داخل الشبكة الوعائية.
- اختر Analyze > Set Measurements وفعّل Area و Area fraction. اختر Analyze > Measure لتحديد المساحة الوعائية.
- احسب المساحة الوعائية الإيجابية لـ CD31 كنسبة مئوية من المساحة الكلية للعضوانية.
- حلل ما لا يقل عن ثلاث عضوانيات لكل دفعة من ثلاث دفعات مستقلة. صَدّر القياسات للتحليل الإحصائي.
- تقدير تغطية الخلايا الحوطية الإيجابية لـ PDGFR-β
- التقط صور z-stack بؤرية لعضوانيات كاملة في اليوم 15 مصبوغة لـ CD31 و PDGFR-β. أنشئ MIPs من صور z-stacks.
- استورد صور MIPs الخاصة بـ CD31 و PDGFR-β إلى Fiji/ImageJ وتحقق من محاذاة الصور.
- طبق عتبة على قناة CD31 لإنشاء قناع ثنائي يحدد الشبكة الوعائية.
- طبق عتبة على قناة PDGFR-β باستخدام نفس نهج التجزئة لإنشاء قناع ثنائي لإشارة الخلايا الحوطية.
- اختر Process > Image Calculator وطبق عملية AND على أقنعة CD31 و PDGFR-β لتحديد البكسلات المتداخلة.
- قس مساحة الإشارة المتداخلة.
- احسب تغطية الخلايا الحوطية كـ (المساحة الإيجابية لـ PDGFR-β داخل الأوعية الإيجابية لـ CD31/إجمالي المساحة الوعائية الإيجابية لـ CD31) × 100%.
- حلل ما لا يقل عن ثلاث عضوانيات لكل دفعة من ثلاث دفعات مستقلة. صَدّر القياسات للتحليل الإحصائي.
- تحليل مؤشر التفرع باستخدام AngioTool
- التقط صور z-stack بؤرية لعضوانيات كاملة في اليوم 15 مصبوغة لـ CD31. أنشئ MIPs من صور z-stacks.
- شغّل AngioTool وحمل صورة MIP.
- حدد قطر الوعاء وفقاً لقطر الوعاء النموذجي الملاحظ في الصور.
- اضبط عتبة الكثافة لتجزئة الشبكة الوعائية مع استبعاد إشارة الخلفية. حدد الحد الأدنى لحجم الوعاء لاستبعاد الشوائب الصغيرة.
- أجرِ التحليل وسجل مساحة الوعاء، وكثافة الأوعية، والطول الإجمالي للأوعية، وعدد الوصلات، ومؤشر التفرع.
- تحقق من الصورة الناتجة من خلال التأكد من تحديد الأوعية باللون الأصفر، وعرض الهيكل الوعائي باللون الأحمر، وتمييز نقاط التفرع بنقاط زرقاء.
- صَدّر النتائج الكمية من AngioTool.
- حلل ما لا يقل عن ثلاثة حقول رؤية لكل دفعة من ثلاث دفعات مستقلة وجمع البيانات للتحليل الإحصائي.
- قياس قطر التجمعات
6. تحليل تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي للعضويات الوعائية
ملاحظة: قم بإجراء جميع عمليات عزل الـ RNA والإجراءات اللاحقة في ظروف خالية من الـ RNase.
- استخلاص RNA
- جمع 5–10 من العضيّات الوعائية الناضجة في اليوم 15 في أنبوب طرد مركزي دقيق سعة 1.5 mL خالٍ من RNase. إزالة الوسط المتبقي تماماً.
ملاحظة: يتم تجميع عضيّات متعددة عند الضرورة للحصول على كمية كافية من RNA. - إضافة 350 µL من محلول التحلل (lysis buffer) المدعم بـ 1% β-mercaptoethanol.
- سحب العينات بالماصة 10–15 مرة حتى تتحلل العضيّات تماماً.
- نقل ناتج التحلل إلى عمود دوران للتخلص من DNA الجينومي موضوع في أنبوب تجميع. يتم الطرد المركزي عند 11,000 × g لمدة 30 s في درجة حرارة الغرفة.
- التخلص من العمود والاحتفاظ بالسائل النافذ.
- إضافة حجم مساوٍ من الإيثانول بتركيز 70%، حوالي 350 µL، إلى السائل النافذ والخلط جيداً بالماصة.
- نقل ما يصل إلى 700 µL من الخليط إلى عمود دوران RNA موضوع في أنبوب تجميع. يتم الطرد المركزي عند 11,000 × g لمدة 30 s والتخلص من السائل النافذ.
- إضافة 350 µL من محلول الغسيل 1 (wash buffer 1) إلى العمود. يتم الطرد المركزي عند 11,000 × g لمدة 30 s والتخلص من السائل النافذ.
- تحضير خليط DNase I عن طريق دمج 10 µL من DNase I مع 70 µL من محلول هضم DNase لكل عينة.
- إضافة 80 µL من خليط DNase I مباشرة إلى غشاء العمود والتحضين في درجة حرارة الغرفة لمدة 15 min.
- إضافة 350 µL من محلول الغسيل 1 إلى العمود. يتم الطرد المركزي عند 11,000 × g لمدة 30 s والتخلص من السائل النافذ.
- إضافة 500 µL من محلول الغسيل 2 (wash buffer 2) إلى العمود. يتم الطرد المركزي عند 11,000 × g لمدة 30 s والتخلص من السائل النافذ.
- تكرار عملية الغسيل باستخدام 500 µL من محلول الغسيل 2.
- طرد العمود الفارغ مركزياً عند 11,000 × g لمدة 2 min لتجفيف الغشاء.
- نقل العمود إلى أنبوب طرد مركزي دقيق جديد سعة 1.5 mL خالٍ من RNase. إضافة 30–50 µL من الماء الخالي من RNase مباشرة إلى الغشاء والتحضين في درجة حرارة الغرفة لمدة 1 min.
- الطرد المركزي عند 11,000 × g لمدة 1 min لاسترداد RNA. يتم تخزين RNA عند −80 °C حتى الاستخدام.
ملاحظة: يتم تقييم تركيز ونقاء RNA باستخدام القياس الطيفي. يُعتبر نطاق نسبة A260/A280 بين 1.8–2.1 مقبولاً.
- جمع 5–10 من العضيّات الوعائية الناضجة في اليوم 15 في أنبوب طرد مركزي دقيق سعة 1.5 mL خالٍ من RNase. إزالة الوسط المتبقي تماماً.
- تخليق cDNA
- تحضير خليط تفاعل النسخ العكسي على الثلج.
- دمج 600 ng من RNA الكلي مع 4 µL من المزيج الرئيسي لـ RT الذي يحتوي على إنزيم النسخ العكسي، والمحلول المنظم، وdNTPs، وبادئات عشوائية. إضافة الماء الخالي من RNase حتى يصل الحجم النهائي إلى 20 µL.
- تحضين التفاعل عند 37 °C لمدة 15 min، يليه 85 °C لمدة 5 s.
- تخزين cDNA الناتج عند −20 °C حتى الاستخدام.
- تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qPCR)
- تحضير 9 µL من المزيج الرئيسي لـ qPCR لكل تفاعل عن طريق دمج 5 µL من 2× SYBR Green master mix، و3 µL من الماء الخالي من RNase، و1 µL من البادئات الأمامية والعكسية المخلوطة مسبقاً بتركيز 10 µM لكل منها.
- توزيع 9 µL من المزيج الرئيسي في كل بئر من ألواح qPCR ذات 96 بئراً.
- إضافة 1 µL من cDNA إلى كل بئر للحصول على حجم تفاعل نهائي قدره 10 µL.
- ختم اللوح بفيلم لاصق بصري والطرد المركزي عند 1,000 × g لمدة 1 min.
- إجراء عملية المسخ الأولي عند 95 °C لمدة 30 s.
- إجراء 40 دورة تضخيم عند 95 °C لمدة 5 s تليها 60 °C لمدة 30 s.
- إجراء تحليل منحنى الانصهار لتأكيد نوعية القطع المتضخمة.
ملاحظة: يتم تشغيل كل عينة في مكررين أو ثلاثة مكررات. - حساب التعبير النسبي للجين المستهدف باستخدام طريقة 2−ΔΔCt. يتم معايرة قيم Ct بالنسبة للجين المرجعي (مثل GAPDH) ومعايرة التعبير مقابل عينات hiPSC غير المتمايزة.
7. التحليل الإحصائي
- اعرض البيانات الكمية في صورة المتوسط ± الانحراف المعياري (SD) من ثلاث مكررات بيولوجية مستقلة على الأقل (n ≥ 3) لكل حالة.
- تعامل مع كل دفعة مستقلة كمكرر بيولوجي واحد لقياسات التجميع وقطر العضوانيات، واحسب متوسط الـ 30 بنية فردية المقاسة داخل كل دفعة للحصول على متوسط واحد على مستوى الدفعة.
- احسب متوسط قياسات المساحة الوعائية، وتغطية الخلايا الحوطية، ومؤشر التفرع من عدة عضوانيات أو حقول داخل كل دفعة للحصول على قيمة واحدة على مستوى الدفعة، واستخدم هذه القيم على مستوى الدفعة للمقارنات الإحصائية.
- قارن البروتوكول المُحسَّن ببروتوكول Wimmer الأصلي باستخدام اختبار Student's t-test غير المقترن ثنائي الذيل.
- حدد الدلالة الإحصائية عندما تكون p < 0.05. ووضح مستويات الدلالة كـ p < 0.05، وp < 0.01، وp < 0.001، حسبما ينطبق.
- أجرِ جميع التحليلات الإحصائية باستخدام برنامج التحليل الإحصائي الإصدار 10.
النتائج
يتيح البروتوكول المُحسَّن الموصوف هنا توليد عضوانيات وعائية ناضجة من الخلايا الجذعية المستحثة متعددة القدرات البشرية (hiPSCs) في غضون 15 يوماً تقريباً باستخدام استراتيجية تمايز تدريجية (الشكل 1A). وباختصار، تم توليد تجمعات hiPSC في أطباق منخفضة الالتصاق مدعمة بـ 0.25% PVA على هزاز مداري (اليوم -1). تم بدء تحفيز الأديم المتوسط في اليوم 0 باستخدام CHIR99021 (12 µM) وBMP-4 (30 ng/mL) لمدة 3 أيام، يليه تحديد السلالة الوعائية باستخدام VEGF-A (100 ng/mL) وفورسكولين (2 µM) لمدة يومين (الأيام 3-5). وفي اليوم 5، تم غمر التجمعات في مصفوفة من الكولاجين I والغشاء القاعدي وزراعتها في وسط N2B27 مدعم بـ VEGF-A (100 ng/mL) وFGF-2 (100 ng/mL) و15% FBS لتعزيز التبرعم الوعائي. وفي اليوم 10، تم عزل الشبكات الوعائية الفردية من الهلام ونقلها إلى أطباق 96-well منخفضة الالتصاق، بحيث يتم وضع عضواني واحد في كل بئر، لمزيد من النضج. وبحلول اليوم 15، تم الحصول على عضوانيات وعائية ناضجة ذات شكل مستدير ومغلف بالكامل (الشكل 1B).
لتأكيد الهوية الوعائية للخلايا المتمايزة، أُجري صبغ مناعي فلوري للحزمة الكاملة للكاشف البطاني CD31، جنباً إلى جنب مع صبغ نووي مضاد باستخدام Hoechst. وكشف المجهر البؤري عن شبكات بطانية واسعة موجبة لـ CD31 تُشكل تراكيب أنبوبية متفرعة. كما أظهر إعادة البناء ثلاثي الأبعاد لصور z-stack مدى تعقيد الشبكات الوعائية داخل العضوانيات (الشكل 1C). تم أيضاً تقييم كفاءة التمايز عن طريق تحليل PCR الكمي في الوقت الحقيقي للجينات النوعية للسلالة الوعائية. وقد ارتفع تعبير الكواشف البطانية CD31 وCDH5 وكاشف الخلايا الحوطية PDGFR-β بشكل ملحوظ في العضوانيات في اليوم 15 مقارنة بخلايا hiPSCs غير المتمايزة. وفي المقابل، انخفض تعبير كواشف تعدد القدرات OCT4 وSOX2 وNANOG بشكل ملحوظ، مما يؤكد نجاح التمايز نحو السلالة الوعائية (الشكل 1D). وأظهر الصبغ المشترك لـ CD31 وPDGFR-β أن الخلايا الحوطية الموجبة لـ PDGFR-β كانت مرتبطة ارتباطاً وثيقاً بالأنابيب البطانية الموجبة لـ CD31 وتغلفها، مما يشير إلى تكوين تراكيب وعائية ذات تغطية من الخلايا الحوطية (الشكل 1E). وتثبت هذه النتائج مجتمعة أن البروتوكول المُحسّن يولد بشكل موثوق عضوانيات وعائية تضم كلاً من الخلايا البطانية والخلايا الحوطية ضمن شبكة وعائية ثلاثية الأبعاد معقدة.
لتقييم التحسينات التي حققها البروتوكول المُحسّن بشكل منهجي، أُجريت تحليلات مورفومترية كمية لمقارنة العضوانيات الناتجة عن بروتوكول Wimmer الأصلي وتلك الناتجة عن البروتوكول المُحسّن عبر عدة دفعات مستقلة. وكشف المجهر الضوئي عن فروق مورفولوجية ملحوظة بين البروتوكولين طوال فترة التمايز؛ فبينما أنتج البروتوكول الأصلي تجمعات وعضوانيات ذات أحجام غير متجانسة وأشكال غير منتظمة في مراحل متعددة، أنتج البروتوكول المُحسّن تجمعات موحدة باستمرار ذات حدود ملساء بدءاً من اليوم 0، والتي تطورت لاحقاً إلى عضوانيات وعائية ناضجة أكثر استدارة ومتساوية الحجم بحلول اليوم 15 (الشكل 2A).
أكد التحليل الكمي لقطر التجمعات في اليوم 0 أن البروتوكول المُحسَّن أنتج تجمعات أكثر تجانساً بشكل ملحوظ (120.3 ± 5.4 µm، CV = 4.47%؛ تم قياس 30 تجمعاً لكل دفعة؛ n = 3 دفعات مستقلة) مقارنة بالبروتوكول الأصلي (112.2 ± 34.7 µm، CV = 30.93%؛ n = 3 دفعات مستقلة؛ t = 6.159، df = 4، p = 0.004؛ الشكل 2B). وقد استمر هذا التحسن في التجانس حتى نهاية مرحلة التمايز. حيث أظهرت العضوانيات في اليوم 15 التي تم إنتاجها باستخدام البروتوكول المُحسَّن تباينًا أقل بكثير في الحجم (670.8 ± 63.5 µm، CV = 9.47%؛ تم قياس 30 عضوانية لكل دفعة؛ n = 3 دفعات مستقلة) مقارنة بتلك التي أُنتجت باستخدام البروتوكول الأصلي (615.4 ± 270.9 µm، CV = 44.0%؛ n = 3 دفعات مستقلة؛ t = 8.430، df = 4، p = 0.001؛ الشكل 2C).
تم تقييم تكوين الشبكة الوعائية بعد ذلك من خلال قياس مدى التغطية البطانية الإيجابية لـ CD31 وتغطية الخلايا الحولية الإيجابية لـ PDGFR-β. وعبر ثلاث دفعات مستقلة، أنتج البروتوكول المُحسَّن تغطية بطانية أكبر بشكل ملحوظ مقارنة بالبروتوكول الأصلي (40.1 ± 2.9% مقابل 28.0 ± 7.0%؛ t = 2.856، df = 4، p = 0.05؛ الشكل 2D). كما كانت تغطية الخلايا الحولية أكبر بشكل ملحوظ باستخدام البروتوكول المُحسَّن (36.2 ± 2.5% مقابل 17.5 ± 5.2%؛ t = 6.636، df = 4، p = 0.003) (الشكل 2E). وأظهر تحليل مؤشر التفرع باستخدام AngioTool أن العضوانيات التي تم توليدها باستخدام البروتوكول المُحسَّن شكلت شبكات وعائية أكثر تعقيداً (50.2 ± 3.8 مقابل 24.1 ± 6.9 points/mm2؛ t = 6.163، df = 4، p = 0.004؛ الشكل 2F). وأخيراً، تم تقييم الكفاءة الإجمالية لتكوين العضوانيات كنسبة مئوية من التجمعات الأولية التي تطورت إلى عضوانيات وعائية ناضجة بحلول اليوم 15. وعبر ثلاث دفعات مستقلة، حقق البروتوكول المُحسَّن كفاءة تكوين أعلى بشكل ملحوظ (64.3 ± 3.8%؛ n = 3) من البروتوكول الأصلي (41.3 ± 10.8%؛ n = 3؛ t = 3.433، df = 4، p = 0.03)، وهو ما يوازي زيادة تقريبية بمقدار 1.6 ضعف في إنتاجية العضوانيات (60-67 مقابل 29-50 عضوانية لكل 1 × 10⁶ خلية بداية؛ الشكل 2G). كما قلل البروتوكول المُحسَّن بشكل كبير من التباين بين الدفعات (SD, 3.8% مقابل 10.8%)، مما أثبت زيادة القدرة على إعادة إنتاج النتائج.
تلخص الجدول 1 النتائج الكمية للبروتوكولات الأصلية والمحسنة، بما في ذلك قطر التجمعات والعضيات، وحصيلة العضيات وكفاءة التكوين، والمساحة الوعائية، وتغطية الخلايا الحوطية، ومؤشر التفرع، ومعدل الفشل، والتباين بين الدفعات. كما توضح الجدول 2 تركيبات الأوساط ومحاليل المصفوفة المستخدمة لصيانة الخلايا الجذعية البشرية المستحثة متعددة القدرات (hiPSC) وتمايز العضيات الوعائية، بينما يوضح الجدول 3 تركيبة محلول الحجب المستخدم في صبغ التألق المناعي للعينات الكاملة. وسرد الجدول 4 تسلسلات البادئات المستخدمة في تحليل تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (quantitative real-time PCR). وتتوفر التركيزات التشغيلية وظروف التحضير للكواشف الرئيسية المستخدمة أثناء توليد وتوصيف العضيات الوعائية في الجدول التكميلي 1.
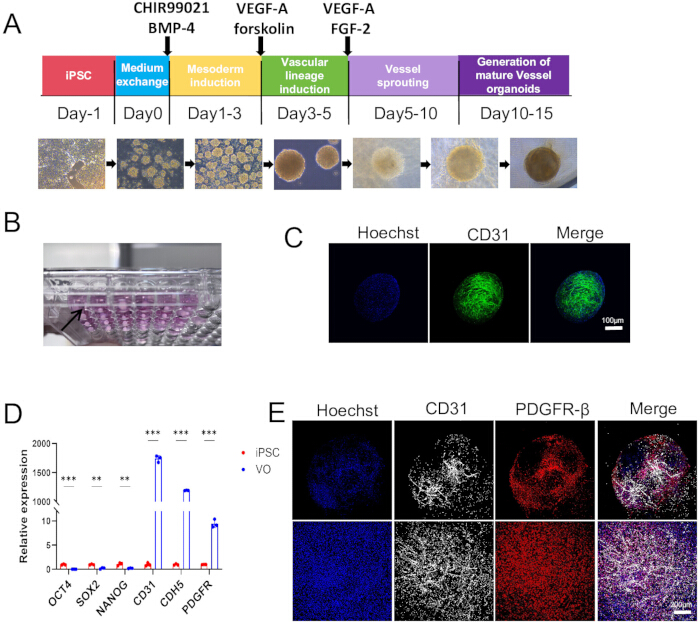
الشكل 1: توليد وتوصيف العضوانيات الوعائية المشتقة من الخلايا الجذعية البشرية المستحثة متعددة القدرات. (A) تمثيل تخطيطي لبروتوكول تمايز العضوانيات الوعائية التدريجي. تخضع تجمعات hiPSC لحث الأديم المتوسط باستخدام CHIR99021 وBMP-4، يليه حث السلالة الوعائية باستخدام VEGF-A والفورسكولين، ثم التبرعم الوعائي في وجود VEGF-A وFGF-2، والنضوج اللاحق إلى عضوانيات وعائية. توضح صور الحقل المضيء التمثيلية التغيرات المورفولوجية أثناء التمايز من اليوم −1 إلى اليوم 15. (B) صورة عيانية تمثيلية لعضوانيات وعائية ناضجة مستزرعة بشكل فردي في طبق ذي 96 بئراً. (C) صور مجهرية بؤرية تمثيلية لعضوانية وعائية في اليوم 15 مصبوغة بـ CD31 (أخضر) ومصبوغة تباينياً بـ Hoechst (أزرق)، مما يظهر الشبكة البطانية داخل العضوانية. شريط المقياس = 100 µm. (D) تحليل تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qPCR) لعلامات تعدد القدرات OCT4 وSOX2 وNANOG وعلامات السلالة الوعائية CD31 وCDH5 وPDGFR-β في العضوانيات الوعائية (VO) في اليوم 15 مقارنة بخلايا hiPSCs غير المتمايزة. تم تقديم البيانات كمتوسط ± SD من ثلاث تجارب مستقلة. تم تحديد الدلالة الإحصائية باستخدام اختبار Student's t-test غير المزدوج ثنائي الذيل. (E) صور تمثيلية للتألق المناعي للتركيب الكامل لعضوانية وعائية في اليوم 15 مصبوغة بـ CD31 (أبيض)، وPDGFR-β (أحمر)، وHoechst (أزرق)، مما يوضح ارتباط الخلايا الحولية الموجبة لـ PDGFR-β مع الشبكات البطانية الموجبة لـ CD31. شريط المقياس = 200 µm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
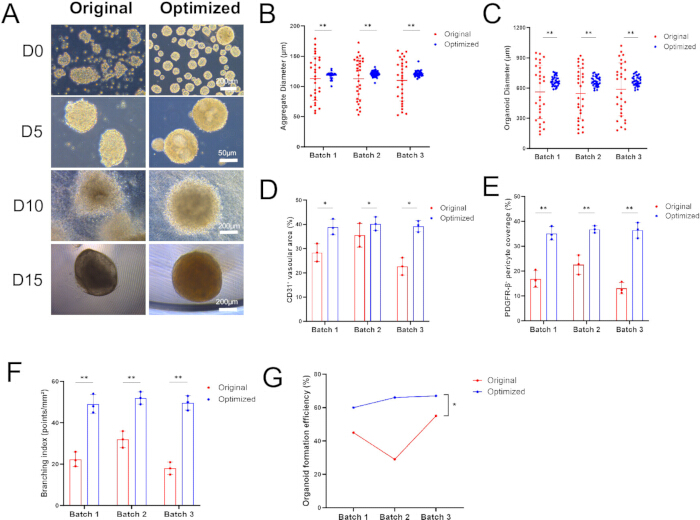
الشكل 2: مقارنة كمية للعضوانيات الوعائية التي تم إنتاجها باستخدام بروتوكول Wimmer الأصلي والبروتوكول المُحسَّن. (A) صور ممثلة بالمجال المضيء توضح مورفولوجيا التجمعات والعضوانيات الوعائية الناتجة عن البروتوكولين الأصلي والمُحسَّن في اليوم 0 (D0)، واليوم 5 (D5)، واليوم 10 (D10)، واليوم 15 (D15). أشرطة المقياس = 200 µm (D0)، و50 µm (D5)، و200 µm (D10)، و200 µm (D15). (B) قياس كمي لقطر التجمعات في اليوم 0 عبر ثلاث دفعات مستقلة. تم قياس ثلاثين تجمعاً لكل دفعة ولكل حالة، وحُسب متوسط النتائج للحصول على متوسط على مستوى الدفعة. (C) قياس كمي لقطر العضوانيات في اليوم 15 عبر ثلاث دفعات مستقلة. تم قياس ثلاثين عضوانية لكل دفعة ولكل حالة، وحُسب متوسط القياسات للحصول على متوسط على مستوى الدفعة. (D) قياس كمي للمساحة الوعائية الموجبة لـ CD31 في العضوانيات الناتجة عن البروتوكولين الأصلي والمُحسَّن عبر ثلاث دفعات مستقلة. (E) قياس كمي لتغطية الخلايا الحولية الموجبة لـ PDGFR-β عبر ثلاث دفعات مستقلة. (F) قياس كمي لمؤشر التفرع الوعائي باستخدام AngioTool عبر ثلاث دفعات مستقلة. (G) كفاءة تكوين العضوانيات عبر ثلاث دفعات مستقلة، وحُسبت كنسبة مئوية للتجمعات الأولية التي تطورت إلى عضوانيات وعائية ناضجة بحلول اليوم 15. يتم عرض البيانات كمتوسط ± SD لثلاثة متوسطات مستقلة على مستوى الدفعة (n = 3 دفعات مستقلة لكل حالة). تم تحديد الدلالة الإحصائية باستخدام اختبار Student's t-test غير المقترن ثنائي الذيل على المتوسطات على مستوى الدفعة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الجدول 1: مقارنة كمية لإنتاج العضوانيات الوعائية باستخدام بروتوكول Wimmer الأصلي والبروتوكول المُحسَّن. مقارنة لقطر التجمعات والتباين في الحجم في اليوم 0، وقطر العضوانيات والتباين في الحجم في اليوم 15، ومردود العضوانيات، وكفاءة تكوين العضوانيات، والمساحة الوعائية الموجبة لـ CD31، وتغطية الخلايا الحولية الموجبة لـ PDGFR-β، ومؤشر التفرع الوعائي، ومعدل الفشل، والتباين بين الدفعات. يتم عرض القيم كمتوسط ± SD حيثما ينطبق ذلك. تم الحصول على قياسات التجمعات والعضوانيات من 30 بنية لكل دفعة عبر ثلاث دفعات مستقلة لكل حالة. وتم الحصول على قياسات المساحة الوعائية وتغطية الخلايا الحولية والتفرع من ثلاثة عضوانيات أو حقول على الأقل لكل دفعة عبر ثلاث دفعات مستقلة. الاختصارات: CV = معامل الاختلاف؛ SD = الانحراف المعياري. يرجى النقر هنا لتحميل هذا الجدول.
الجدول 2: تحضير الأوساط والمحاليل المصفوفية للحفاظ على hiPSC وتمايز العضوانيات الوعائية. تركيب وتحضير وسط الحفاظ على hPSC المحدد كيميائياً (PGM1)، ومحلول طلاء مصفوفة الغشاء القاعدي، ومحلول غسيل المرور EDTA بنسبة 0.02%، والوسط الأساسي N2B27، ووسط التمايز الكامل N2B27، ومحلول الكولاجين I المستخدم للحفاظ على hiPSC، والتمايز، وتكوين الشبكة الوعائية، وزراعة العضوانيات. تم توفير ظروف التخزين ومتطلبات التحضير حيثما كان ذلك مناسباً. الاختصارات: DMEM = وسط Eagle المعدل من قبل Dulbecco؛ EDTA = حمض إيثيلين ثنائي أمين رباعي حمض الأسيتيك؛ FBS = مصل جنين البقر؛ FGF-2 = عامل نمو الخلايا الليفية 2؛ hiPSC = خلية جذعية بشرية مستحثة متعددة القدرات؛ NEAA = أحماض أمينية غير أساسية؛ PGM1 = Pluripotency Growth Master 1؛ VEGF-A = عامل نمو البطانة الوعائية A. يرجى النقر هنا لتنزيل هذا الجدول.
الجدول 3: تحضير محلول الحجب لصبغ التألق المناعي الكامل للعضوانيات الوعائية.تكوين وظروف تخزين محلول الحجب والنفاذية المستخدم في صبغ التألق المناعي الكامل. الاختصارات: BSA = ألبومين المصل البقري؛ FBS = مصل جنين البقر؛ PBS = المحلول الملحي المنظم بالفوسفات. يرجى النقر هنا لتنزيل هذا الجدول.
الجدول 4: تتابعات البادئات المستخدمة لتحليل تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qPCR). استُخدمت تتابعات البادئات الأمامية والعكسية لتقييم تعبير مؤشرات السلالة الوعائية CD31 وCDH5 وPDGFR-β، ومؤشرات تعدد القدرات OCT4 وSOX2 وNANOG، والجين التدبيري GAPDH. عُرضت تتابعات البادئات في الاتجاه 5′→3′. الاختصارات: qPCR = تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي. يرجى النقر هنا لتحميل هذا الجدول.
الجدول التكميلي 1: تركيزات العمل وظروف التحضير للكواشف الرئيسية المستخدمة في توليد العضوانيات الوعائية وتوصيفها. تركيزات العمل، والتخفيفات، وظروف التحضير أو التخزين لكل من Y-27632 وCHIR99021 وBMP-4 وVEGF-A والفورسكولين (forskolin) وFGF-2 وPVA ومخففات الأجسام المضادة الأولية والثانوية ومحلول عمل Hoechst ومحلول الغسيل PBST والمثبت PFA بتركيز 4%. تُستخدم هذه الكواشف أثناء استعادة الخلايا الجذعية البشرية المستحثة متعددة القدرات (hiPSC) وتجميعها، وتحريض الأديم المتوسط والسلالة الوعائية، وتكوين الشبكة الوعائية، والتلوين المناعي الفلوري للعينة الكاملة، وتثبيت العضوانيات. الاختصارات: BMP-4 = البروتين المكون للعظم 4؛ FGF-2 = عامل نمو الخلايا الليفية 2؛ PFA = بارافورمالدهيد؛ PVA = كحول البولي فينيل؛ PBST = محلول ملحي منظم بالفوسفات يحتوي على Tween 20؛ VEGF-A = عامل نمو البطانة الوعائية A يرجى النقر هنا لتحميل هذا الجدول.
المناقشة
يقدم البروتوكول المُحسّن الموصوف هنا عدة تحسينات أساسية على نظام تمايز العضوانيات الوعائية الذي أسسه في الأصل Wimmer et al.18، وذلك بهدف تعزيز التجانس وقابلية التكرار والسلامة البنيوية لتوليد العضوانيات الوعائية. وبالمقارنة مع البروتوكول الأصلي، توفر الطريقة المُحسّنة تحسينات ملحوظة في الجوانب التالية. أولاً، يؤدي تحسين ظروف تكوين التجمعات إلى تحسين تجانس الأجسام المضغية بشكل كبير. فقد اعتمد البروتوكول الأصلي على التجميع الطبيعي في أطباق 6 آبار منخفضة الالتصاق لتوليد تجمعات hiPSC، حيث تم استزراع 2 × 10⁵ خلية لكل بئر لسلالة NC8 أو 5 × 10⁵ خلية لكل بئر لسلالة H9، مع الاعتماد على الجاذبية لدفع تجميع الخلايا. تعتمد هذه الطريقة بشكل كبير على التحكم التجريبي في كثافة الاستزراع ووقت الحضن، مما يؤدي إلى تباين في حجم التجمعات بين دفعة وأخرى. وفي البروتوكول المُحسّن، ومع الاحتفاظ بأطباق 6 آبار منخفضة الالتصاق للتجميع، تم إدخال ثلاثة تعديلات لتحسين انتظام التجمعات: (1) استزراع 5 × 10⁵ خلية لكل بئر لتوفير أعداد كافية من الخلايا لضمان تجميع مستقر؛ (2) إضافة 0.25% من كحول البولي فينيل (PVA) لتقليل الالتصاق غير النوعي بين الخلايا والركيزة وتعزيز التجميع المتجانس بين الخلايا وبعضها؛ (3) حضن الأطباق على هزاز مداري عند 37 °C لتسهيل التوزيع الموحد للخلايا والتجميع المتزامن من خلال التقليب اللطيف والمستمر. ارتبطت هذه التعديلات بإنتاج تجمعات ذات شكل كروي أكثر انتظاماً وحواف أكثر نعومة، مما وفر مادة بداية أكثر تجانساً لعمليات حث الأديم المتوسط والتمايز الوعائي اللاحقة (الشكل 2A،B).
إذا كانت التجمعات صغيرة جدًا أو هشّة بشكل مفرط أو فشلت في تكوين حدود ملساء، فيجب أولاً التحقق من حيوية الخلايا قبل الاستزراع، حيث أن ضعف صحة الخلايا سبب شائع لعدم كفاءة التجميع. وبالنسبة لخطوط hiPSC ذات قدرة التجميع الضعيفة، قم بزيادة كثافة الاستزراع إلى 1 × 10⁶ خلية لكل بئر أو تمديد فترة الحضن من يوم واحد إلى 2–3 أيام. وعلى العكس من ذلك، تنتج التجمعات الكبيرة بشكل مفرط عمومًا عن اندماج تجمعات متعددة؛ لذا قم بزيادة تكرار عملية السحب اللطيف بالممصّة خلال فترة الحضن لتقليل اندماج التجمعات. إن الحفاظ على حجم تجمعات موحد في هذه المرحلة الأولية أمر بالغ الأهمية، لأن عدم تجانس الحجم يرتبط ارتباطًا مباشرًا بالتباين في كفاءة التمايز الوعائي.
ثانياً، يساهم تحسين استراتيجية تغيير الوسط في الحفاظ بشكل أفضل على بيئة المزرعة أثناء التمايز الوعائي. فخلال مرحلة تكوين الشبكة الوعائية، يحتفظ البروتوكول بثلث الوسط المكيف عند كل عملية تغيير للوسط، ويتم استبدال الثلثين المتبقيين بوسط N2B27 تمايز كامل وطازج يحتوي على المكملات نفسها. في المقابل، كان البروتوكول الأصلي يعتمد على الاستبدال الكامل للوسط. ونظراً لأن VEGF-A و FGF-2 غير مستقرين في ظروف المزرعة عند 37 °C، فإن الاستبدال الكامل للوسط قد يؤدي إلى تقلبات كبيرة في تركيزات عوامل النمو، مما قد يؤثر سلباً على استمرار تكاثر الخلايا البطانية والبرعمة الوعائية. إن الاحتفاظ بجزء من الوسط المكيف يحافظ على العوامل المحفزة لتكوين الأوعية التي تفرزها الخلايا والمكونات خارج الخلوية، مع تقليل التغيرات المفاجئة في بيئة المزرعة. وقد ارتبطت هذه الاستراتيجية بتكوين شبكة وعائية أكثر قوة وتغطية أكبر بالخلايا الحوطية (الشكل 2D,E).
إذا أصبحت مصفوفة الهلام غير مستقرة أو انهارت بعد إضافة الوسط، تأكد أولاً من تسخين الوسط مسبقاً بشكل كامل ليصل إلى 37 °C، حيث أن الوسط البارد قد يسبب انكماش الهلام. بالإضافة إلى ذلك، تحقق من بلمرة الكولاجين من خلال التأكد من أن pH محلول collagen I يبلغ حوالي 7.4، وأن دفعات collagen I ومصفوفة الغشاء القاعدي (basement membrane matrix) تشكل هلامات مستقرة. وإذا ظلت المصفوفة هشّة أو فشلت في التصلب، استخدم دفعة جديدة من مصفوفة الغشاء القاعدي أو collagen I، وقم بتحضين الهلام لمدة ساعتين كاملتين عند 37 °C قبل إضافة الوسط. يمكن تمديد فترة البلمرة حتى 3 h إذا لزم الأمر.
ثالثاً، يؤدي تبسيط عملية عزل العضوانيات الوعائية وإنضاجها إلى تحسين الإنتاجية والاتساق. في البروتوكول الأصلي، كانت الشبكات الوعائية التي نمت في أطباق ذات 12 بئراً حتى اليوم 10 تُنقل بشكل فردي إلى أطباق ذات 6 آبار منخفضة الالتصاق لمدة يوم واحد من الزرع (اليوم 11)، ثم تُنقل إلى أطباق ذات 96 بئراً فائقة انخفاض الالتصاق لمواصلة الزرع حتى اليوم 15. تزيد هاتان الخطوتان من نقل الأطباق من التعقيد التشغيلي ومخاطر فقدان العضوانيات. يقدم البروتوكول المُحسّن ثلاثة تبسيطات مهمة: (1) نقل العضوانيات المعزولة مباشرة إلى أطباق ذات 96 بئراً فائقة انخفاض الالتصاق، بمعدل عضوانية واحدة لكل بئر، مما يلغي خطوة الزرع المتوسطة في الأطباق ذات 6 آبار ويقلل من المناولة والأضرار الميكانيكية؛ (2) زرع عضوانية واحدة لكل بئر لمنع الاندماج أثناء الزرع المعلق والحفاظ على استقلالية كل عضوانية؛ و(3) إجراء تغييرات يومية للوسط لمدة 5 أيام لتوفير إمداد مستمر من العناصر الغذائية وعوامل النمو، مما يسمح للعضوانيات بالنضج لتصبح هياكل مستديرة ومغلفة بالكامل. تبسط هذه التعديلات زرع العضوانيات، وتحسن الإنتاجية، وتسهل تطبيقات فحص الأدوية عالية الإنتاجية اللاحقة.
لتقليل فقدان العضوانيات أثناء العزل، تأكد من انفصال مصفوفة كولاجين I والغشاء القاعدي تماماً عن قاع البئر قبل القطع. حرك ملعقة مختبرية (spatula) معقمة برفق على طول قاع البئر من الحافة نحو المركز حتى يطفو الهلام بالكامل بحرية. عند نقل العضوانيات المعزولة، استخدم ماصة ذات استخدام واحد ومعقمة بدلاً من رأس ماصة P1000 لتقليل الإجهاد الميكانيكي والحد من تمزق العضوانيات. في حالة تفتت العضوانيات أثناء المناولة، أعد تقييم جودة التمايز، بما في ذلك حيوية الخلايا الأولية ونشاط عوامل النمو الرئيسية مثل VEGF-A و FGF-2. إذا اندمجت العضوانيات أثناء الزراعة المعلقة، افصلها برفق باستخدام رأسي ماصة P200. ومع ذلك، فإن زراعة العضوانيات بشكل فردي، بواقع واحدة في كل بئر، منذ بداية مرحلة النضج هي النهج الأكثر فعالية لمنع الاندماج.
رابعاً، يؤدي توحيد نظام وسط الزرع إلى تبسيط البروتوكول وتقليل التباين بين الدفعات الإنتاجية. استخدم البروتوكول الأصلي وسط N2B27 أثناء تحفيز الأديم المتوسط باستخدام CHIR99021 و BMP-4 وأثناء تحفيز السلالة الوعائية باستخدام VEGF-A والـ forskolin، ولكنه انتقل إلى وسط زرع خلايا مكونة للدم خالي من المصل يحتوي على FBS و VEGF-A و FGF-2 أثناء تكوين الشبكة الوعائية. وفي المقابل، يستخدم البروتوكول المُحسن وسط التمايز الكامل N2B27 المكمل بـ 15% FBS و VEGF-A و FGF-2 طوال فترة تكوين الشبكة الوعائية ونضج العضوانيات اللاحق، وبذلك يتم الحفاظ على نفس التركيبة الأساسية لـ N2B27. تقلل هذه الاستراتيجية الموحدة من المتغيرات الإضافية المرتبطة بتغيير أوساط الزرع وتبسط تحضير الكواشف. قد يساهم استخدام مكملات B27 و N2 المحددة في وسط N2B27 أيضاً في تحسين الاتساق بين الدفعات، رغم أن المساهمة النسبية لهذا التعديل، بمعزل عن تغييرات البروتوكول الأخرى، لم يتم فصلها تجريبياً في الدراسة الحالية. وقد دُعمت فعالية البروتوكول المُحسن من خلال زيادة تنظيم علامات السلالة الوعائية وانخفاض تنظيم علامات تعدد القدرات في العضوانيات في اليوم 15 (الشكل 1D). بالإضافة إلى ذلك، كشف صبغ التألق المناعي للعينة الكاملة عن شبكات بطانية واسعة CD31+ وخلايا حوطية PDGFR-β+ مرتبطة بها وثيقاً، مما يؤكد تكوين هياكل وعائية ذات تغطية من الخلايا الجدارية (الشكل 1C،E). يُعد PDGFR-β علامة مثبتة للخلايا الحوطية في العضوانيات الوعائية البشرية، كما ظهر في الدراسات السابقة21.
إذا كان التبرعم الوعائي ضعيفاً، أو إذا تكونت تجمعات كبيرة غير متمايزة دون شبكات بطانية، فقد يكون السبب الكامن وراء ذلك هو عدم كفاية حث الأديم المتوسط. تأكد من أن CHIR99021 و BMP-4 نشطان ويتم استخدامهما بالتركيزات الصحيحة. قد يعكس ضعف تجنيد الخلايا الحوطية، والذي يستدل عليه بقلة خلايا PDGFR-β+ المحيطة بالأنابيب البطانية CD31+، نشاطاً غير مثالي لـ VEGF-A أو FGF-2. وقد يؤدي اختبار دفعات مختلفة من عوامل النمو والتحقق وظيفياً من قدرة دفعات FBS على دعم تكوين العضوانيات الوعائية إلى تحسين تغطية الخلايا الجدارية. وللتحقق بشكل منهجي من فعالية التحسينات المنهجية الأربعة المذكورة أعلاه، أُجريت تحليلات مورفومترية كمية لمقارنة البروتوكول المحسن ببروتوكول Wimmer الأصلي (الشكل 2; الجدول 1). وأظهر المجهر ذو المجال المضيء اختلافات مورفولوجية ملحوظة بين البروتوكولين طوال فترة التمايز. وبينما أنتج البروتوكول الأصلي تجمعات وعضوانيات ذات أحجام غير متجانسة وأشكال غير منتظمة في جميع المراحل، أنتج البروتوكول المحسن باستمرار تجمعات موحدة ذات حدود ملساء بدءاً من اليوم 0. تطورت هذه التجمعات لاحقاً إلى عضوانيات وعائية ناضجة أكثر استدارة وموحدة الحجم بحلول اليوم 15 (الشكل 2A).
أكد التحليل الكمي أن البروتوكول المُحسَّن أنتج تجمعات أكثر اتساقاً بشكل ملحوظ في اليوم 0 (120.3 ± 5.4 µm، CV = 4.47%، n = 3 دفعات مستقلة) مقارنة بالبروتوكول الأصلي (112.2 ± 34.7 µm، CV = 30.93%، n = 3 دفعات مستقلة؛ الشكل 2B). وقد استمر هذا التحسن في الاتساق حتى نقطة نهاية التمايز، حيث أظهرت العضوانيات في اليوم 15 التي تم إنتاجها باستخدام البروتوكول المُحسَّن أيضاً انخفاضاً ملحوظاً في تباين الحجم (الشكل 2C). وتشير هذه النتائج إلى أن الجمع بين التجميع بمساعدة PVA والرج المداري يقلل من عدم تجانس حجم التجمعات مقارنة بالبروتوكول الأصلي، مما ينتج مادة بدء أكثر تجانساً لتحفيز الأديم المتوسط والتمايز الوعائي اللاحق. ومع ذلك، ونظراً لأن البروتوكول المُحسَّن يتضمن تعديلات متعددة متزامنة، فإن المساهمة المحددة لكل تغيير فردي في التحسينات الملحوظة لم يتم فصلها تجريبياً في الدراسة الحالية.
كما أدى البروتوكول المحسّن إلى تعزيز تكوين الشبكة الوعائية بشكل ملحوظ، حيث زادت تغطية الخلايا البطانية CD31+ (40.1 ± 2.9% مقابل 28.0 ± 7.0%؛ t = 2.856، df = 4، p = 0.05؛ الشكل 2D) وتغطية الخلايا الحول وعائية PDGFR-β+ (36.2 ± 2.5% مقابل 17.5 ± 5.2%؛ t = 6.636، df = 4، p = 0.003؛ الشكل 2E). وأظهر تحليل مؤشر التفرع باستخدام AngioTool أن البروتوكول المحسّن ولّد شبكات وعائية أكثر تعقيداً (50.2 ± 3.8 مقابل 24.1 ± 6.9 points/mm2؛ t = 6.163، df = 4، p = 0.004؛ الشكل 2F). وقد تعود هذه التحسينات إلى عاملين متكاملين؛ أولاً، توفر التجمعات المتجانسة ظروفاً بدائية أكثر اتساقاً للتبرعم الوعائي. ثانياً، قد يساعد الاحتفاظ بثلث الوسط المكيف في الحفاظ على العوامل المحفزة لتكوين الأوعية المضافة مع الحفاظ على العوامل التي تفرزها الخلايا والتي يمكن أن تدعم هجرة الخلايا الحول وعائية وارتباطها بالأنابيب البطانية.
وفي النهاية، حقق البروتوكول المحسّن كفاءة في تكوين العضويات أعلى بنحو 1.6 ضعف (64.3 ± 3.8% مقابل 41.3 ± 10.8%؛ t = 3.433, df = 4, p = 0.03)، وهو ما يعادل 60–67 عضوية ناضجة لكل 1 × 10⁶ من الخلايا الأولية مقارنة بـ 29–50 عضوية تم الحصول عليها باستخدام البروتوكول الأصلي (الشكل 2G). ومن الملاحظ أن البروتوكول المحسّن قلل بشكل كبير من التباين بين الدفعات، حيث تراوحت متوسطات الدفعات من 60.0% إلى 67.0% (SD = 3.8%)، بينما أظهر البروتوكول الأصلي تباينًا أكبر بكثير بين الدفعات، حيث تراوحت متوسطات الدفعات من 29.0% إلى 50.0% (SD = 10.8%).
وبشكل جماعي، فإن البيانات الكمية المعروضة في الشكل 2 و الجدول 1 تدعم هذه النتائج التحسينات المنهجية التي حققها البروتوكول المُحسَّن في تجانس التجمعات، وتكوين الشبكة الوعائية، واستقطاب الخلايا الحولية، والتعقيد الوعائي، وإنتاجية العضوانيات. وتعالج هذه التحسينات بشكل مباشر القيود الرئيسية للبروتوكول الأصلي والمتعلقة بقابلية التكرار وقابلية التوسع.
باختصار، يعالج البروتوكول المُحسّن الحالي القيود الرئيسية للطريقة الأصلية من خلال أربعة تحسينات أساسية: تحسين عملية تكوين التجمعات، وتعديل استراتيجية تبديل الوسط الغذائي، وتبسيط سير عمل عزل العضوانيات وإنضاجها، وتوحيد نظام الوسط الزرعي. وتجعل هذه التعديلات مجتمعةً توليد العضوانيات الوعائية أكثر كفاءة وقابلية للتكرار وللتوسع، مما يوفر منصة in vitro أكثر موثوقية لدراسات التطور الوعائي، ونمذجة الأمراض، وفحص الأدوية. ومع ذلك، وكما هو الحال في الطريقة الأصلية، لا يزال البروتوكول الحالي يعتمد على مكونات مشتقة من الحيوانات، بما في ذلك مصفوفة الغشاء القاعدي ومصل الجنين البقري FBS. لذا، قد تركز الجهود المستقبلية على تطوير مصفوفات اصطناعية محددة كيميائياً وأنظمة زرع خالية من المصل لتعزيز الإمكانات الانتقالية لهذه المنصة بشكل أكبر.
من المهم ملاحظة أن البروتوكول المُحسَّن قد أدخل عدة تعديلات متزامنة — وهي مكملات PVA، والرج المداري، والاحتفاظ بالوسط المكيف، وسير عمل نضج مبسط، ونظام موحد لوسط الزرع — ولا تحدد البيانات الحالية أي تعديل فردي هو المسؤول عن التحسينات الملحوظة في تجانس التجمعات، أو التغطية البطانية، أو تغطية الخلايا الحوطية، أو إنتاجية العضوانيات. لقد صُممت الدراسة الحالية لتقييم التأثير التراكمي لهذه التحسينات كبروتوكول كامل، بدلاً من تحليل مساهمة كل مكون فردي. وستكون هناك حاجة إلى تجارب عامليّة أو تجارب استئصال مستقبلية لتحديد الدور المحدد لكل تعديل ومواصلة تحسين البروتوكول.
على الرغم من هذه القيود، يمثل البروتوكول الحالي أساساً عملياً وقابلاً للتكرار لإنتاج العضوانيات الوعائية. وتوفر العديد من الاتجاهات الناشئة في مجال العضوانيات الوعائية فرصاً لمزيد من تحسين البروتوكول وتوسيع تطبيقاته. فقد قدمت التطورات الحديثة في الهيدروجيلات الاصطناعية والخالية من المكونات الحيوانية بدائل واعدة لمصفوفة الغشاء القاعدي والكولاجين من النوع I، حيث أظهرت الهيدروجيلات الديناميكية تعزيز تكوين الأوعية الدموية وتوجيه تمايز العضوانيات الوعائية إلى شريينات22. كما تم تطوير طريقة قوية خالية من المصادر الحيوانية تعتمد على مزارع "القطرة الجالسة" أحادية الطبقة للحفاظ على السلامة الخلوية مع تحسين القابلية للتكرار والتوافق مع الأتمتة23. وقد وفرت دراسات الأوميكس المتعددة للخلايا المفردة دقة غير مسبوقة في التغاير الخلوي أثناء تطور عضوانيات الأوعية الدموية البشرية، مما كشف عن تحولات رئيسية في مصير وحالة الخلايا قد توجّه التحسين المستهدف لبروتوكولات التمايز24. ومكن دمج منصات الموائع الدقيقة من تطوير عضوانيات وعائية وظيفية على شريحة تحتوي على شبكات شعيرية قابلة للتروية، مما يعزز نمو العضوانيات ونضجها ووظيفتها من خلال التروية داخل الأوعية25. علاوة على ذلك، بدأت تظهر أنظمة متخصصة للعضوانيات الوعائية على شريحة كمنصات واعدة لفحص الأدوية ونمذجة الأمراض، مع تطبيقات محتملة في الطب التجديدي والجراحة الترميمية26. وإلى جانب بروتوكول التمايز المُحسَّن المعروض هنا، قد تسرع هذه النهج التكميلية من التطبيق الانتقالي للعضوانيات الوعائية في نمذجة الأمراض والفحص العلاجي.
على الرغم من التحقق من صحة البروتوكول الحالي باستخدام سلالة واحدة من الخلايا الجذعية المحفزة متعددة القدرات (iPSC)، إلا أن قوة منهج التمايز مدعومة بنتائج متسقة عبر عدة دفعات مستقلة. ومع ذلك، سيكون التقييم عبر سلالات إضافية من iPSC و ESC ضروريًا لترسيخ قابليته للتعميم بشكل أكبر. لقد صُممت الظروف المحسنة، ولا سيما مكملات PVA، والرج المداري، والاحتفاظ بالوسط المكيف، لمعالجة الجوانب الأساسية لزراعة العضوانيات، بما في ذلك توحيد التكتل، ونقل الكتلة، والدعم الجنيب خلوي، وبالتالي قد توفر فوائد مماثلة عبر خلفيات مختلفة من السلالات الخلوية.
الإفصاحات
يصرح المؤلفون بعدم وجود أي تضارب في المصالح المالية.
شكر وتقدير
تم دعم هذا العمل من قبل المؤسسة الوطنية للعلوم الطبيعية في الصين (NSFC) من خلال صندوق العلماء الشباب (C) (رقم 32200655) والبرنامج العام (رقم 32270847). كما يشكر المؤلفون منصة الخدمات العامة بجامعة Anhui على دعمها.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 0.22 μm مرشح أعلى الزجاجة | Nalgene | FPE204030 | للترشيح العقيم للأوساط والمحاليل المنظمة |
| أنبوب مخروطي سعة 15 مللتر | سبارك جاد (SparkJade) | GD0001 | معقم |
| أنبوب طرد مركزي دقيق سعة 2 ملل* | Eppendorf | 22363204 | معقم |
| 2-مركابتويثانول (1000×) | Gibco | 21985023 | يُستخدم داخل خزانة استخلاص الغازات |
| Alexa Fluor 488 AffiniPure F2 جزء من جسم مضاد (IgG) من الحمير مضاد للأرانب (السلسلتان الثقيلة والخفيفة) | موسوم | Y1104 | جسم مضاد ثانوي؛ يخفف بنسبة 1:300 |
| Alexa Fluor 594 AffiniPure F(ab′)2 جزء من الجسم المضاد IgG (H+L) من الحمار المضاد للماعز | ملصق | Y1007 | جسم مضاد ثانوي؛ يخفف بنسبة 1:300 |
| جسم مضاد لـ CD31 | تأشير الخلايا | 3528 ثانية | الأجسام المضادة الأولية؛ تُخفف بنسبة 1:100 في محلول الحجب |
| مضاد مستقبل عامل النمو المشتق من الصفائح الدموية (Anti PDGFR) β جسم مضاد | Zenbio | 347269 | الأجسام المضادة الأولية؛ تُخفف بنسبة 1:100 في محلول الحجب (blocking buffer) |
| جهاز عد الخلايا الآلي | Life Technologies | كونتيس™ ٢ | تتضمن شرائح غرفة العد |
| مكمل B27 (50×) | Gibco | 17504044 | بالنسبة لوسط N2B27؛ يتم الإذابة عند درجة حرارة 4ºج، قم بتقسيم العينة إلى حصص متساوية وتخزينها في −20ºج)، تجنب التجميد والإذابة |
| جهاز طرد مركزي مكتبي | زونكيا | SC-3610 | باستخدام دوّار ذي دلاء متأرجحة |
| كابينة السلامة البيولوجية (الفئة الثانية) | Thermo Fisher | عذرًا، يبدو أنك لم تقم بتوفير نص المصدر المراد ترجمته. يرجى تزويدي بالنص الإنجليزي الذي تود ترجمته إلى العربية، وسأقوم بترجمته وفقًا للمعايير المهنية والعلمية المحددة. | غير متاح |
| بروتين تشكيل العظام 4 (BMP4) | Proteintech | HZ-1045 | أعد التشكيل في ماء مقطر مزدوج (ddH) معقم2من 0 إلى 100 نانوغرام/μL، ثم قسّمه إلى حصص متساوية وخزنه في −20 °C |
| ألبومين المصل البقري (BSA) | بايوشارب (Biosharp) | 9048-46-8 | للمحلول المنظم للحجب |
| CHIR99021 | الاستخلاص بالسوائل فوق الحرجة (MCE) | HY-10182 | حضّر محلولاً مركزاً بتركيز 10 ملي مولار في DMSO، ويُخزن في −20ºجلفنة لمدة تصل إلى سنة واحدة |
| أول أكسيد الكربون2 حضّانة | Fisher Scientific | LS-CO150 | 37 ºC، 5% CO2، مرطب |
| طبق تصوير بؤري | Biosharp | BS-20-GJM | للتصوير بعد الصبغ |
| المجهر البؤري (Confocal Microscope) | LEICA | غير متاح | مجهز بـ 10×, 20×, 63× العدسات الشيئية وبرمجيات ZEN |
| وسط مزارع ديلجويس-ماككونيل (DMEM) | فيفاسيل (Vivacell) | C3113-0500 | لتخفيف Matrigel ومحلول الكولاجين I (collagen I) |
| DMEM/F-12، مكمل GlutaMAX | Gibco | 10565018 | لتخفيف الـ Matrigel والوسط الغذائي N2B27 |
| إيديتات (0.5 مولار، pH 8.0) | Invitrogen | AM9260G | يُخفف باستخدام المحلول الملحي المُنظم بالفوسفات (PBS) ليصل التركيز إلى 0.02% لغرض التمرير. |
| مصل جنين البقر (FBS) | Gibco | 10270-106 | من أجل وسط التمايز الكامل N2B27 (بتركيز نهائي 15%) |
| FGF-2 | Novoprotein | C046 | قم بتحضير محلول مخزون بتركيز 1 مجم/مل في محلول PBS معقم، ثم قسمه إلى حصص تخزينية واحفظه في درجة حرارة −20ºكربون |
| فورسكولين | ر&دي سيستمز (D Systems) | 1099 | قم بتحضير محلول مخزون بتركيز 10 ملي مولار في DMSO، ويُحفظ في −20ºج |
| هيبس (1 مولار) | Gibco | 15630080 | لمحلول الكولاجين I |
| هويكست (Hoechst) | Beyotime | C1071S-4 | قم بتحضير محلول مخزون بتركيز 1 ملجم/مل في ماء منزوع الأيونات، ثم قم بتقسيمه إلى حصص صغيرة وتخزينه في −20ºكربون |
| المجهر المقلوب | LEICA | صمام ثنائي باعث للضوء بنظام DMIL | الملاحظة الروتينية للخلايا |
| ماتريجيل (مخفض عوامل النمو) | ستيمـا (STEEMA) | BM05 | يُحفظ في −20ºبعد تقسيم العينات، تجنب التجميد والإذابة المتكرر؛ وتداول العينات على الثلج. |
| محلول الأحماض الأمينية غير الأساسية لوسط MEM (NEAA, 100×) | Gibco | 11140035 | لوسط N2B27 الغذائي |
| مكمل N2 (100×) | Gibco | 17502048 | بالنسبة للوسط الغذائي N2B27؛ يُحفظ في −20ºج يحفظ بعيداً عن الضوء |
| وسط نيوروبيزال (Neurobasal Medium) | Gibco | 21103049 | لوسط N2B27 |
| ماء خالٍ من النوكلياز (خالٍ من DNase/RNase) | تسمية (Lablead) | Doo55WJ | لتحضير الـ RNA/cDNA وإجراء تفاعل البوليميراز المتسلسل الكمي (qPCR) |
| رجّاج مداري | مختبر جوان | لا يوجد نص مترجم | لخطوات الغسيل |
| بارافورمالدهيد (محلول بتركيز 4%) | Servicebio | G1101 | يُخفف باستخدام المحلول الملحي الملبد بالفوسفات (PBS) ليصل التركيز إلى 4% لغرض التثبيت؛ ويُستخدم داخل خزانة استخلاص الغازات (fume hood). |
| بنسلين-ستريبتومايسين (100×) | Gibco | 15140122 | لوسط N2B27 |
| وسط PGM1 | سيلابي (Cellapy) | A1517001 | وسط تمديد الخلايا الجذعية المستحثة متعددة القدرات البشرية (hiPSC)؛ يُحفظ في درجة حرارة 4 مئويةºيُحفظ بعيداً عن الضوء، ومستقر لمدة أسبوعين |
| ملحق PGM1 (25×) | سيلابي (Cellapy) | A1517101 | للاستخدام مع الوسط الأساسي PGM1 |
| كحول متعدد الفاينيل (PVA) | Sigma-Aldrich | P8136 | تُذاب في PGM1 بتركيز 0.25% (وزن/حجم) لتعزيز التجميع |
| PureCol (كولاجين بقري من النوع الأول، 3 ملغ/مل) | مصفوفة حيوية متطورة | 5005 | بالنسبة لمزيج الكولاجين I وMatrigel؛ اختبار الدفعة للتأكد من قدرة البلمرة |
| جهاز التدوير الحراري للتفاعل التسلسلي للبوليميراز الكمي (qPCR) | Thermo Fisher | StepOnePlus™ | بخاصية منحنى الانصهار؛ للكشف عن تفاعل البوليميراز المتسلسل في الوقت الحقيقي (real-time PCR) |
| طقم النسخ العكسي | بيولوجيا دقيقة | AG11706 | لتخليق الحمض النووي المتمم (cDNA) من الحمض النووي الريبي (RNA) الكلي؛ يحتوي على مزيج رئيسي للنسخ العكسي (RT master mix) يشتمل على إنزيم النسخ العكسي، ومحلول منظم، وديوكسي نيوكليوتيدات ثلاثية الفوسفات (dNTPs)، وبادئات عشوائية. |
| طقم استخلاص الحمض النووي الريبوزي (RNA) | Yeasen | 19221ES50 | لعزل الحمض النووي الريبي (RNA) الكلي من العضوانيات الوعائية؛ يتضمن أعمدة لإزالة الحمض النووي الجينومي (gDNA) وإنزيم دي إن إيز 1 (DNase I) الخالي من الريبانوكلياز (RNase). |
| بيكربونات الصوديوم (7.5%) | Gibco | 25080094 | لمحلول الكولاجين من النوع الأول (collagen I) |
| ديوكسيكولات الصوديوم | Sigma-Aldrich | D6750 | حضّر محلولاً بتركيز 1% (وزن/حجم) في ماء منزوع الأيونات لاستخدامه كمحلول حجب. |
| هيدروكسيد الصوديوم (1.0 عياري) | Sigma-Aldrich | S2770 | لضبط الرقم الهيدروجيني (pH) لمحلول الكولاجين من النوع الأول (collagen I) |
| ماصات معقمة صالحة للاستخدام مرة واحدة (10 مل) | مختبر بكمان (Bkmamlab) | 110205007 | معقمة، ومغلفة بشكل فردي |
| رؤوس ماصات ذات مرشح معقمة (1000، 200، 20 μL) | بيوزيم (Biozym) | VT0270/VT0250/VT0220 | معقم، مع مرشح |
| إبرة معقمة (30 G) | غير متاح | لا يوجد نص للترجمة. يرجى تقديم النص المصدر باللغة الإنجليزية لنقوم بترجمته إلى اللغة العربية وفقاً للمعايير العلمية والأكاديمية المحددة. | لتشريح الشبكات الوعائية |
| ملعقة مختبرية معقمة (طرف مستدير) | Fisher Scientific | 21-401-5 | الفولاذ المقاوم للصدأ |
| مزيج SYBR Green الرئيسي | بيولوجيا دقيقة | AG11733 | 2× التركيز الخاص بتفاعل البوليميراز المتسلسل الكمي (qPCR)؛ يحتوي على إنزيم DNA polymerase ببدء ساخن، ومحلول منظم، وdNTPs، وصبغة SYBR Green |
| طبق 12 عينًا مُعالج للزراعة النسيجية | BD Falcon | 353043 | للتضمين في الهلام وزراعة الشبكة الوعائية |
| طبق بـ 6 آبار معالج لزراعة الأنسجة | Eppendorf | 30720113 | المعالجة القياسية بـ TC |
| Triton X-100 | Sigma-Aldrich | T9084 | لمحلول الحجب (blocking buffer) |
| صبغة تريبان الزرقاء (0.4%) | Thermo Fisher | 15250061 | لعد الخلايا |
| Tween 20 | Sigma-Aldrich | P7949 | لمحلول غسيل PBS-T بتركيز 0.05% |
| طبق 6 فجوات فائق انخفاض الالتصاق | Corning | 3471 | لتكوين التجمعات والتمايز |
| طبق بـ 96 بئراً ذات قاع مستدير وفائق انخفاض الالتصاق | Beyotime | FULA962-6 قطع | لاستزراع العضيّات الوعائية في وسط معلق |
| عامل نمو البطانة الوعائية أ (VEGF-A) | Proteintech | HZ-1038 | قم بتحضير محلول مخزن بتركيز 1 مجم/مل في محلول PBS معقم، ثم قسمه إلى حصص صغيرة وخزنه في −20ºكربون |
| حمام مائي | نمر أزرق | HWS-24 | 37ºسي |
| Y-27632 | القياس الكهربائي المجهري (MCE) | HY-10071 | قم بتحضير محلول مخزون بتركيز 10 ملي مولار في محلول PBS معقم أو DMSO، ويُحفظ في درجة حرارة −20ºج؛ تركيزات العمل: 5 μM (إذابة التجميد)، 50 μM (تكون التجمعات) |
المراجع
- Lancaster MA, Knoblich JA. Organogenesis in a dish: modeling development and disease using organoid technologies. Science. 2014;345:1247125.
- Clevers H. Modeling development and disease with organoids. Cell. 2016;165:1586-1597.
- Spence JR, et al. Directed differentiation of human pluripotent stem cells into intestinal tissue in vitro. Nature. 2011;470:105-109.
- Lancaster MA, et al. Cerebral organoids model human brain development and microcephaly. Nature. 2013;501:373-379.
- Quadrato G, et al. Cell diversity and network dynamics in photosensitive human brain organoids. Nature. 2017;545:48-53.
- Takasato M, et al. Kidney organoids from human iPS cells contain multiple lineages and model human nephrogenesis. Nature. 2015;526:564-568.
- Takebe T, et al. Vascularized and functional human liver from an iPSC-derived organ bud transplant. Nature. 2013;499:481-484.
- Huch M, et al. Long-term culture of genome-stable bipotent stem cells from adult human liver. Cell. 2015;160:299-312.
- Nakano T, et al. Self-formation of optic cups and storable stratified neural retina from human ESCs. Cell Stem Cell. 2012;10:771-785.
- Mansour AA, et al. An in vivo model of functional and vascularized human brain organoids. Nat Biotechnol. 2018;36:432-441.
- Ham O, et al. Blood vessel formation in cerebral organoids formed from human embryonic stem cells. Biochem Biophys Res Commun. 2020;521:84-90.
- Sun XY, et al. Generation of vascularized brain organoids to study neurovascular interactions. eLife. 2022;11:e76707.
- Grebenyuk S, Ranga A. Engineering organoid vascularization. Front Bioeng Biotechnol. 2019;7:39.
- Parikh M, Pierce GN. Considerations for choosing an optimal animal model of cardiovascular disease. Can J Physiol Pharmacol. 2024;102:75-85.
- Krug A, et al. Three-dimensional spheroid models for cardiovascular biology and pathology. Mechanobiol Med. 2025;3:100144.
- Carmeliet P. Angiogenesis in health and disease. Nat Med. 2003;9:653-660.
- Wimmer RA, et al. Human blood vessel organoids as a model of diabetic vasculopathy. Nature. 2019;565:505-510.
- Wimmer RA, et al. Generation of blood vessel organoids from human pluripotent stem cells. Nat Protoc. 2019;14:3082-3100.
- Naderi-Meshkin H, et al. Vascular organoids: unveiling advantages, applications, challenges, and disease modelling strategies. Stem Cell Res Ther. 2023;14:292.
- Xu C, et al. Vascular organoid generation from human-induced pluripotent stem cells. J Vis Exp. 2024;214:e67125.
- Frenz-Wiessner S, et al. Generation of complex bone marrow organoids from human induced pluripotent stem cells. Nat Methods. 2024;21:868-881.
- Sun D, et al. Matrix viscoelasticity controls differentiation of human blood vessel organoids into arterioles and promotes neovascularization in myocardial infarction. Adv Mater. 2025;37:e2410802.
- Hoffmann A, et al. Animal-origin-free method for generating blood vessel organoids. Sci Rep. 2026;16:12096.
- Nikolova MT, et al. Fate and state transitions during human blood vessel organoid development. Cell. 2025;188:3329-3348.e31.
- Quintard C, et al. A microfluidic platform integrating functional vascularized organoids-on-chip. Nat Commun. 2024;15:1452.
- Sun L, Wang P, Lin X, Qiu Y. Microfluidic vascular organoids-on-chips: a promising platform for advancing plastic and reconstructive surgery. Chinese Journal of Plastic and Reconstructive Surgery. 2025.