تجمع هذه الدراسة بين أنسجة بشرية مزدوجة، وخطين خلويين لسرطان الخلايا الحرشفية في الرئة، ومقاييس استقرار الحمض النووي الريبي (RNA) والبروتين، وتجارب الإنقاذ الجيني، ونموذج طعم غريب مع تثبيط FOXD1، وذلك لفحص تنظيم FOXD1 المرتبط بـ METTL3 وتوفير إطار عمل قابل للتكرار لاستقصاء الآليات المسرطنة ما بعد النسخ.
مقالة بحثية
تنظيم FOXD1 المرتبط بـ METTL3 يعزز تطور سرطان الخلايا الحرشفية في الرئة: نهج تجريبي متعدد النماذج
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
تعد خيارات علاج سرطان الخلايا الحرشفية في الرئة (LUSC) محدودة، مما يحفز البحث في المسارات الجزيئية التي تدعم نمو الخلايا الورمية. تم تقييم تعبير Forkhead box D1 (FOXD1) باستخدام التحليل التفاعلي لتوصيف التعبير الجيني (GEPIA)، وتفاعل البوليميراز المتسلسل الكمي للنسخ العكسي (qRT-PCR)، ولطخة ويسترن، والكيمياء النسيجية المناعية في أنسجة وخطوط خلوية مقترنة. تم استنزاف FOXD1 أو methyltransferase-like 3 (METTL3) في خلايا LUSC، وتم تقييم حيوية الخلايا، والموت الخلوي المبرمج، والهجرة، وN6-methyladenosine (m6A) الشامل، واستقرار النسخ، واستقرار البروتين. واختبر نموذج طعم غريب مع تثبيط FOXD1 دور FOXD1 in vivo؛ بينما لم يتم التلاعب بـ METTL3 في الحيوانات.
كان تعبير FOXD1 أعلى في أنسجة وخلايا سرطان الخلايا الحرشفية في الرئة (LUSC) مقارنة بالمجموعات الضابطة المقابلة. أدى تثبيط FOXD1 إلى تقليل الحيوية والهجرة، وزيادة موت الخلايا المبرمج، وتثبيط نمو الطعم الغريب. ارتبط تعبير METTL3 بـ FOXD1 في أنسجة LUSC المقترنة. وفي الخلايا المستنبتة، أدى تثبيط METTL3 إلى خفض مستويات m6A الكلية ووفرة FOXD1، بينما أدى إعادة تعبير FOXD1 إلى استعادة الأنماط الظاهرية المرتبطة بذلك جزئيًا. وكانت فحوصات Actinomycin D وcycloheximide وMG132 متوافقة مع التغيرات المرتبطة بـ METTL3 في استقرار RNA وبروتين FOXD1.
تدعم هذه البيانات وجود ارتباط وظيفي بين METTL3 وFOXD1 في خلايا LUSC. أما In vivo، فقد أدى تثبيط FOXD1 إلى كبح نمو الطعم الغريب وتقليل صبغة Ki-67، مما يثبت أن FOXD1 يعمل كمحفز لنمو الطعم الغريب. ولا يزال من الضروري إثبات الارتباط المباشر بين METTL3 وFOXD1، وتعديل m6A في مواقع محددة، والاعتماد على البروتينات القارئة، والتحقق من مسار METTL3–FOXD1 الكامل in vivo.
المقدمة
لا يزال سرطان الرئة سبباً رئيسياً للوفيات الناجمة عن السرطان في جميع أنحاء العالم1,2. وغالباً ما يتم تشخيص سرطان الرئة ذو الخلايا الحرشفية (LUSC)، وهو نوع نسيجي رئيسي من سرطان الرئة غير صغير الخلايا (NSCLC)، بعد أن يصبح العلاج الموضعي الشافي غير ممكن3,4. ورغم تحسن العلاج الجهازي، لا يزال العديد من المرضى يعانون من نتائج علاجية ضعيفة5. لذا، فإن تحديد البرامج الجزيئية التي تدعم نمو LUSC قد يكشف عن مؤشرات حيوية قابلة للاختبار وفرضيات علاجية.
يعتبر عامل النسخ Forkhead box D1 (FOXD1) من العوامل المتورطة في سرطانات القولون والمستقيم، والرأس والعنق، والمعدة، والحرشفية الفموية، وسرطانات الثدي6,7,8,9,10. وفي سرطان الرئة غير صغير الخلايا (NSCLC)، ارتبط تعبير FOXD1 بالنتائج السلبية وبنمو الخلايا والانبثاث تجريبياً11,12. كما يعمل MicroRNA-30a-5p على تثبيط تكاثر وهجرة خلايا سرطان الرئة الحرشفية (LUSC) من خلال استهداف FOXD113. وتحدد هذه الملاحظات FOXD1 كمنظم محتمل لسرطان الرئة الحرشفية (LUSC)، ولكنها لا توضح كيفية الحفاظ على تعبيره في هذا المرض.
تعد مادة N6-methyladenosine (m6A) تعديلاً عكسياً للـ RNA يتم تركيبه وإزالته وتفسيره بواسطة بروتينات الكاتب والماحي والقارئ. ويمكن لهذا النظام التنظيمي أن يؤثر على معالجة الـ RNA وترجمته وتحلله، وقد رُبط اختلاله بالأنماط الظاهرية الخبيثة والاستجابة للعلاج14,15,16,17. ويعتبر Methyltransferase-like 3 (METTL3) مكوناً تحفيزياً في معقد كاتب m6A؛ ومع ذلك، فإن وجود ارتباط بين METTL3 و FOXD1 وحده لا يمكن أن يثبت حدوث عملية ميثيلة مباشرة أو تنظيماً بوساطة القارئ.
لقد افترضنا أن METTL3 يعزز تطور سرطان الخلايا الحرشفية الرئوي (LUSC) عن طريق الحفاظ على تعبير FOXD1 من خلال التنظيم ما بعد النسخي المرتبط بـ m6A. ومن خلال دمج العينات السريرية المزدوجة، وخطين خلويين من الورم، ومقايسات فقدان الوظيفة والاستعادة، وتحليلات استقرار النسخ والبروتين، ونموذج طعم غريب (xenograft) مع تثبيط تعبير FOXD1، توفر هذه الدراسة إطاراً وظيفياً لاستقصاء العلاقة بين METTL3 وFOXD1 مع التمييز بين الارتباط والـ methylation المباشر في مواقع محددة.
البروتوكول
تم جمع الأنسجة البشرية وفقًا لإعلان هلسنكي، وحصلت العملية على موافقة مجلس المراجعة المؤسسية في المستشفى الأول بجامعة جيلين (رقم الموافقة 2022-339؛ 22 يوليو 2022)، كما تم الحصول على موافقة كتابية مستنيرة من جميع المشاركين. أما بروتوكول التجارب الحيوانية فقد تمت الموافقة عليه من قبل لجنة إدارة الحيوانات في المستشفى الأول بجامعة جيلين (رقم الموافقة 2022-0015؛ 25 يناير 2022)، وتم تنفيذه وفقًا للإرشادات المؤسسية الخاصة برعاية واستخدام الحيوانات.
أفراد الدراسة
تألفت العينات المؤرشفة من 12 زوجاً من أنسجة سرطان الخلايا الحرشفية الرئوية (LUSC) الأولية والأنسجة غير الورمية المجاورة لها، والتي جُمعت من مرضى خضعوا للجراحة في الفترة ما بين يناير 2019 وديسمبر 2020. تضمنت معايير الأهلية للمرضى تأكيد الإصابة بـ LUSC أولي مرضياً، وعدم وجود نقائل موثقة، وعدم تلقي أي علاج موجه ضد LUSC خلال الأشهر الستة السابقة. تم اختيار الحالات باستخدام جدول أرقام عشوائية، وشملت سبعة رجال وخمس نساء تتراوح أعمارهم بين 30 و65 عاماً. تم الحصول على موافقة مستنيرة مكتوبة من جميع المشاركين.
الخطوط الخلوية
تم الحصول على خلايا BEAS-2B الظهارية للشعب الهوائية البشرية (RRID: CVCL_0168)، وخلايا LUSC SK-MES-1 (RRID: CVCL_0630)، وخلايا NCI-H226 (RRID: CVCL_1544) من بنك الخلايا التابع للأكاديمية الصينية للعلوم. تم استزراع الخلايا في وسط Dulbecco's modified Eagle المحتوي على 10% fetal bovine serum و 1% penicillin–streptomycin عند درجة حرارة 37 °C في 5% CO2. تم تجميع المعرفات التجارية في جدول المواد المرفق.
فحص واستعادة الحمض الريبي النووي interfering الصغير (siRNA)
تم فحص ثلاثة جزيئات فردية من الحمض النووي الريبوزي المتداخل الصغير (siRNAs) التي تستهدف FOXD1 أو METTL3 في خلايا SK-MES-1 وNCI-H226. وتم تقييم عملية الإسكات الجيني بعد 48 h من ترانسفكشن (transfection) عن طريق تفاعل البوليميراز المتسلسل الكمي مع النسخ العكسي (qRT-PCR) واللطخة الغربية (western blotting). وقد استُخدم FOXD1 siRNA-1 في اختبارات FOXD1 الوظيفية اللاحقة لأنه حقق أكبر انخفاض في كلا الخطين الخلويين. أما تجارب METTL3 اللاحقة، فقد استُخدم فيها كاشف si-METTL3 المختار من عملية الفحص. ولا يحدد السجل المؤرشف SmartPool أو يحفظ تسلسلاً أو معرفاً للمورد يمكن تعيينه بثقة. وبالنسبة لتجارب الإنقاذ (rescue experiments)، تلقت الخلايا كاشف si-METTL3 المختار، أو بنية التعبير المفرط لـ FOXD1، أو كليهما؛ وتم تقييم التعبير والأنماط الظاهرية الخلوية بعد 48 h من الترانسفكشن.
عزل الحمض النووي الريبوزي (RNA) وتفاعل البلمرة المتسلسل الكمي في الوقت الحقيقي (qRT-PCR)
عُزل الحمض النووي الريبوزي (RNA) الكلي من الأنسجة أو الخلايا باستخدام كاشف الفينول-جوانيدينيوم، ثم أُجري له نسخ عكسي باستخدام طقم نسخ عكسي تجاري. نُفذ تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR) باستخدام خليط رئيسي من TB Green على نظام PCR في الوقت الحقيقي (RRID: SCR_018051). تتوفر تسلسلات البادئات في الجدول 1تم تطبيع التعبير النسبي بالنسبة لإنزيم جليسيرالدهيد-3-فوسفات ديهيدروجيناز (GAPDH). وقد تم تحضير التفاعل والدورة الحرارية وفقًا لبروتوكول الشركة المصنعة للمزيج الرئيسي (master mix) المذكور.
لطخة ويسترن
تم تحلل الأنسجة أو الخلايا في محلول RIPA (radioimmunoprecipitation assay) الذي يحتوي على مثبطات البروتياز. وفُصلت كميات متكافئة من البروتين عن طريق الفصل الكهربائي للهلام بـ SDS-PAGE (sodium dodecyl sulfate–polyacrylamide gel electrophoresis) ثم نُقلت إلى أغشية PVDF (polyvinylidene fluoride). حُضنت الأغشية طوال الليل عند 4 °C مع أجسام مضادة لـ FOXD1 بتركيز (1:1,000)، أو METTL3 بتركيز (1:1,000؛ RRID: AB_2142033)، أو GAPDH بتركيز (1:2,000؛ RRID: AB_10622025)، تلا ذلك استخدام جسم مضاد لـ immunoglobulin G للأرانب مقترن بإنزيم horseradish peroxidase لمدة 1 h في درجة حرارة الغرفة. وكُشف عن الإشارات بواسطة التلألؤ الكيميائي المعزز، مع استخدام GAPDH كعنصر تحكم في التحميل. يحدد جدول المواد الأجسام المضادة الأولية التجارية ويسجل الكاشف الثانوي كجسم مضاد كاشف لـ immunoglobulin G للأرانب.
حيوية الخلايا والموت الخلوي المبرمج
لقياسات الحيوية، تم استزراع خلايا LUSC الضابطة والمحولة في أطباق ذات 96 بئراً بمعدل 2,000 خلية لكل بئر. وبفواصل زمنية مدتها 12 h، تمت إضافة 10 µL من كاشف cell counting kit-8 لكل بئر، وحُضنت الأطباق لمدة 1 h عند 37 °C، وسُجلت الامتصاصية عند 450 nm. ولتحليل الموت الخلوي المبرمج، تم استزراع 1 × 10⁵ خلية لكل بئر في أطباق ذات 6 آبار وتحليلها بعد 48 h من عملية التحويل. تمت معالجة الخلايا المحصودة وفقاً لتعليمات طقم Annexin V–fluorescein isothiocyanate (FITC)/ propidium iodide (PI)، ثم أُعيد تعليقها في 100 µL من محلول الربط المنظم، وصُبغت باستخدام 5 µL من كل كاشف لمدة 30 min في درجة حرارة الغرفة وفي الظلام، وحُللت بواسطة قياس التدفق الخلوي في غضون 4 h.
الهجرة عبر غشاء Transwell
وُضعت خلايا LUSC المنقولة جينياً في وسط خالٍ من المصل في حجرة transwell العلوية؛ بينما احتوت الحجرة السفلية على 500 µL من الوسط المكمل بـ 10% من مصل جنين البقر. وبعد مرور 24 h، تم تثبيت الخلايا المهاجرة باستخدام 4% paraformaldehyde وصبغها بصبغة crystal violet لمدة 10 min. ثم أُزيلت الخلايا غير المهاجرة من على سطح الغشاء العلوي باستخدام مسحة قطنية. وصُوِّرت الخلايا المهاجرة بالمجهر تحت إعدادات تصوير متطابقة، وتم قياسها كمياً باستخدام برنامج ImageJ (RRID: SCR_003070).
تعديل مثيلة m6A
تم قياس الوفرة العالمية لـ m6A باستخدام مقايسة لونية لمثيلة الحمض الريبي النووي RNA. بعد استخلاص RNA وتقييم جودته، تم وضع 200 ng من RNA في كل بئر من آبار المقايسة. أضيف الجسم المضاد لالتقاط (50 µL) لمدة 60 min في درجة حرارة الغرفة. غُسلت الآبار ثلاث مرات، ثم حُضنت مع 50 µL من الجسم المضاد للكشف لمدة 30 min، ثم غُسلت أربع مرات، وحُضنت مع محلول تعزيز الإشارة لمدة 30 min. قِيس الامتصاصية عند 450 nm. اتبعت جميع الخطوات تعليمات الطقم المذكورة.
الكشف عن استقرار mRNA
تم استزراع خلايا LUSC في أطباق ذات 6 آبار ونقل إليها حمض نووي ريبوزي متداخل صغير كضابط سلبي (si-NC) أو حمض نووي ريبوزي متداخل صغير يستهدف METTL3 (si-METTL3). وبعد 48 h، أضيف actinomycin D بتركيز 5 µg/mL لوقف عملية النسخ. جُمعت الخلايا عند 0 h و 2 h و 4 h و 6 h، وعُزل إجمالي الـ RNA، ثم قيست وفرة نسخ FOXD1 بواسطة qRT-PCR.
مقايسات السيكلوهيكسيميد (CHX) و MG132
لكل مقايسة نقطة نهاية للمثبطات، تمت مقارنة الخلايا الضابطة لناقل غير معالجة، والخلايا الضابطة لناقل معالجة بالمثبطات، والخلايا التي تعبر عن METTL3 بشكل مفرط والمعالجة بالمثبطات. استُخدم MG132 بتركيز 10 µM، وCHX بتركيز 20 µM؛ وجُمعت المستخلصات بعد 12 h لإجراء تحليل لطخة ويسترن. وبالنسبة للمسار الزمني لـ CHX، عولجت الخلايا المنقولة بواسطة si-NC أو si-METTL3 بتركيز 20 µM من CHX وجُمعت عند 0 h و3 h و6 h و9 h. وقيست وفرة بروتين FOXD1 عن طريق تحليل لطخة ويسترن.
تجارب In vivo
تم تقسيم فئران BALB/c nude عديمة التيموس بعمر خمسة أسابيع إلى مجموعتين: مجموعة ضابطة سلبية ومجموعة SK-MES-1 مع تثبيط تعبير FOXD1 (عدد الفئران = 8 لكل مجموعة). تلقى كل فأر حقناً تحت الجلد بنحو 8 × 10⁶ خلية. بدأت مراقبة الورم بعد أسبوع واحد من الزرع؛ حيث تم تسجيل حجم الورم كل 4 أيام لمدة 20 يوماً متتالية. تم القتل الرحيم للفئران باستخدام البروتوكولات المؤسسية المعتمدة في اليوم 27 بعد التلقيح، مباشرة بعد القياس النهائي، ومن ثم استئصال الأورام ووزنها وتصويرها. استُخدمت مجموعات خلوية من SK-MES-1 ذات تثبيط مستقر لـ FOXD1 ومجموعات ضابطة سلبية مطابقة لعملية الزرع.
الكيمياء المناعية
تم دمج الأورام المستأصلة في البارافين وتقطيعها بسماكة 4–5 µm. ثم أزيل البارافين من المقاطع، وأعيد ترطيبها، وحُضنت طوال الليل عند 4 °C مع الأجسام المضادة الأولية، ثم حُضنت مع الجسم المضاد الثانوي المناسب لمدة 30 min. وتم تصور الخلايا الإيجابية للمستضد باستخدام ركيزة diaminobenzidine. كما تم تقييم FOXD1 و Ki-67 في الطعوم الغريبة، مع معالجة المقاطع المزدوجة في نفس دفعة الصبغ وتصويرها تحت إعدادات استحواذ متطابقة.
التحليل الإحصائي
أُجريت التحليلات باستخدام برنامج GraphPad Prism الإصدار 8 (RRID: SCR_002798) ولغة R (RRID: SCR_001905). استُخدم اختبار t لطلاب (Student's t-test) للمقارنات بين مجموعتين، واستُخدم تحليل التباين (analysis of variance) للمقارنات التي شملت أكثر من مجموعتين. شملت تحليلات الأنسجة البشرية المقترنة 12 زوجاً من المرضى؛ وتمثل ملخصات التجارب في المختبر (in vitro) ثلاث تجارب بيولوجية مستقلة؛ واستُخدمت ثمانة فئران لكل مجموعة في تحليلات الطعوم الغريبة (xenograft). لم تُعامل المكررات التقنية كملاحظات مستقلة. عُرضت البيانات في صورة المتوسط ± الانحراف المعياري. واعتُبرت القيمة P < 0.05 ثنائية الجانب ذات دلالة إحصائية.
النتائج
يُرفع التعبير عن FOXD1 في أنسجة LUSC البشرية
أظهر استعلام تحليل تفاعلي لترميز التعبير الجيني (GEPIA) زيادة في وفرة النسخ الجينية لـ FOXD1 في عينات سرطان الرئة الحرشفية مقارنة بعينات الرئة الطبيعية، في حين أن المقارنة مع سرطان الرئة الغدي لم تصل إلى دلالة إحصائية (الشكل 1A). وأسفر تحليل 12 عينة زوجية من أنسجة سرطان الرئة الحرشفية والأنسجة غير السرطانية المجاورة عنها عن اتجاه التغير نفسه باستخدام تفاعل البوليميراز المتسلسل الكمي العكسي (qRT-PCR) والتحريض المناعي الغربي (الشكل 1B،C). كما أظهر التلوين المناعي النسيجي إشارة أقوى لـ FOXD1 في مقاطع الأورام مقارنة بالأنسجة المجاورة المزدوجة (الشكل 1D).
يقلل إضعاف FOXD1 من قابلية البقاء والهجرة ويزيد من موت الخلايا المبرمج في خلايا سرطان الرئة الحرشفية
كان وفرة نص FOXD1 أعلى في خلايا SK-MES-1 وNCI-H226 مقارنة بخلايا BEAS-2B (الشكل 2A). تم فحص ثلاث شظى صغيرة مثبطة تستهدف FOXD1؛ وأنتج الشظى-1 أكبر انخفاض تم اكتشافه باستخدام تفاعل البوليميراز المتسلسل الكمي العكسي (qRT-PCR) والتحريض الغربي، وبالتالي تم اختياره للتجارب اللاحقة (الشكل 2B،C). بالمقارنة مع الضابط السلبي، أدّى إخماد FOXD1 إلى تقليل إشارة كاشف خلايا عدّ الخلايا 8 (الشكل 2D)، وزيادة الخلايا الموجبة لـ Annexin V (الشكل 2E)، وانخفاض الانتقال عبر Transwell (الشكل 2F) في كلا سطرين خلويين من سرطان الرئة الحرشفية. تم استخدام مُعدّل مختار واحد فقط، وبالتالي لا تمثل النتائج الوظيفية استبعادًا مستقلًا عن التسلسل للتأثيرات غير المستهدفة.
ترتبط التعبير عن METTL3 بـ FOXD1 في عينات LUSC
تعد ميثيلة m6A تعديلًا كيميائيًا ديناميكيًا وعكسيًا موجودًا على نطاق واسع في الكائنات حقيقية النواة، ويتم تنظيمه بواسطة ناقلات الميثيل ونازعتها، ويتم التعرف عليه ومعالجته بواسطة بروتينات رابطة لـ m6A18. كان إشارة m6A الكلية أعلى في 12 عينة من أنسجة سرطان الرئة الحرشفية (LUSC) مقارنة بالأنسجة المجاورة المزدوجة، وكانت أيضًا أعلى في كل من خطوط خلايا سرطان الرئة الحرشفية مقارنة بخلايا BEAS-2B (الشكل 3A). ازدادت النسخ المشفرة لـ METTL3 وMETTL14 وWTAP وRBM15 في العينات الورمية المزدوجة (الشكل 3B). عبر بيانات GEPIA ومجموعة الأورام المكونة من 12 عينة، أظهر FOXD1 أوضح ارتباط إيجابي مع METTL3؛ في حين كان الارتباط مع RBM15 أضعف (الشكل 3C،D). أظهر التحليل بالمناعة الغربية زيادة في وفرة METTL3 في الأنسجة الورمية (الشكل 3E). تؤكد هذه التحليلات وجود تغيرات مشتركة، وليس تنظيمًا مباشرًا.
يؤدي إضعاف METTL3 إلى تغيير وفرة FOXD1 وظواهر خلايا LUSC
تم فحص ثلاث شظايا رنا متدخلة صغيرة تستهدف METTL3 في خلايا SK-MES-1 وNCI-H226 باستخدام تفاعل البوليميراز المتسلسل الكمي العكسي (qRT-PCR) والتحريض الغربي (الشكل 4A،B). أدى إخماد METTL3 إلى خفض إشارة m6A الشاملة (الشكل 4C). زاد التعبير الزائد عن FOXD1 من مستوى FOXD1 دون زيادة مستوى METTL3 (الشكل 4D)، وأكد تجربة الإنقاذ المكونة من أربع مجموعات انخفاض وفرة FOXD1 بعد إخماد METTL3 واستعادتها بواسطة التركيب الجيني لـ FOXD1 (الشكل 4E،F). قلل إخماد METTL3 من قابلية البقاء والهجرة وزيادة موت الخلايا المبرمج؛ بينما عارض التعبير المتجدد عن FOXD1 جزئياً هذه التغيرات (الشكل 4G–I). وبالتالي، تتماشى بيانات الإنقاذ مع دور FOXD1 كعامل يعمل تنازلياً لـ METTL3 في الخلايا المزروعة.
يُرتبط التخلخل في METTL3 باستقرار RNA وبروتين FOXD1
تشير الأدلة المتزايدة إلى أن تعديل m6A للـmRNA يُعدّل جوانب متعددة من دورة الـmRNA، بما في ذلك التبديل ما قبل النسخي (pre-mRNA splicing)، الترجمة، التصدير النووي-السيتوبلازمي، التحلل، والتبديل19,20. وقد حدد برنامج SRAMP متواليات مرشحة لـm6A في RNA الجين FOXD1، وذكر قاعدة بيانات m6A2Target إنزيم METTL3 ككاتب مُتوقَّع مرتبط بـFOXD1 في خلايا H1299 (الشكل 5A،B). وتعتبر مخرجات هذه القواعد البيانات مُولِّدة للفرضيات، ولا تُثبت الارتباط أو التميثيل المحدد لموقع معين في خلايا سرطان الرئة الحرشفية (LUSC). وبعد منع النسخ باستخدام الأكتينوميسين D، تراجعت مستويات RNA الجين FOXD1 بوتيرة أسرع بعد إسكات الجين METTL3 مقارنة بالخلايا الضابطة (الشكل 5C). كما كانت وفرة FOXD1 أعلى في الخلايا المُفرطة التعبير عن METTL3 والتي عُولجت بـMG132 مقارنة بالضوابط المُعامَلة بـMG132 باستخدام ناقل فارغ، في حين لم يُلاحظ هذا النمط بعد العلاج بـCHX (الشكل 5D،E). وأظهرت التجربة الزمنية باستخدام CHX فقدانًا أسرع للبروتين FOXD1 بعد إسكات الجين METTL3 (الشكل 5F). بشكل جماعي، تتماشى هذه الفحوصات مع تغيرات مرتبطة بـMETTL3 في استقرار RNA وبروتين FOXD1، لكنها لا تحدد الأدينوسين المُعدَّل، ولا تُثبت الارتباط المباشر، ولا تُعرِّف قارئ m6A.
إن تثبيط FOXD1 يقمع نمو زراعة الورم الغازي لسرطان الرئة الحرشفية
لاختبار وظيفة FOXD1 في الجسم الحي، تم زرع خلايا SK-MES-1 الضابطة وخلايا SK-MES-1 المُثبَّطة لـ FOXD1 تحت الجلد في فئران عارية (n = 8 لكل مجموعة). بدءًا من أسبوع بعد الزرع، تم قياس الأورام كل 4 أيام على مدى 20 يومًا، وتم جمعها في اليوم 27 بعد الزرع. كانت الأورام المستأصلة أصغر في مجموعة الإثبات لـ FOXD1 (الشكل 6A)، وكانت منحنيات نموها تزداد بوتيرة أبطأ (الشكل 6B)، وكانت أوزانها النهائية أقل (الشكل 6C). كما انخفض التلوين الخاص بـ FOXD1 وKi-67 في الأورام المُثبَّطة (الشكل 6D). تقيّم هذه التجارب فقط تثبيط FOXD1، ولا تختبر تثبيط METTL3 في الجسم الحي.
باختصار، كان التعبير عن FOXD1 مرتفعًا في أنسجة وخلايا سرطان الرئة الحرشفية، وساهم في التكاثر والهجرة ونمو الزرع الاجنبي. أدى إضعاف التعبير عن METTL3 إلى تقليل مستويات m6A الشاملة، وانخفاض التعبير عن FOXD1، واعتلال الظواهر الخلوية الخبيثة، في حين عاد التعبير عن FOXD1 جزئيًا وعكس هذه التأثيرات. تدعم تجارب الاستقرار تنظيم FOXD1 بعد النسخ المرتبط بـ METTL3، ولكنها لا تثبت حدوث ميثيلة مباشرة في موقع محدد أو استعادة المسار الكامل in vivo. ويُلخص تصميم الدراسة في الشكل 7.
توفر البيانات:
جميع البيانات التي تم تحليلها في هذه الدراسة مُدرجة في المقالة وأشكالها التوضيحية. تتوفر البيانات العددية المُجردة من الهوية الكامنة وراء الملخصات المبلغ عنها من المؤلف المسؤول عند الطلب المعقولة، رهناً بأحكام الحوكمة المؤسسية ومتطلبات حماية المشاركين. لم يتم استخدام أي ملفات محاكاة أو أكواد تحليل مخصصة.
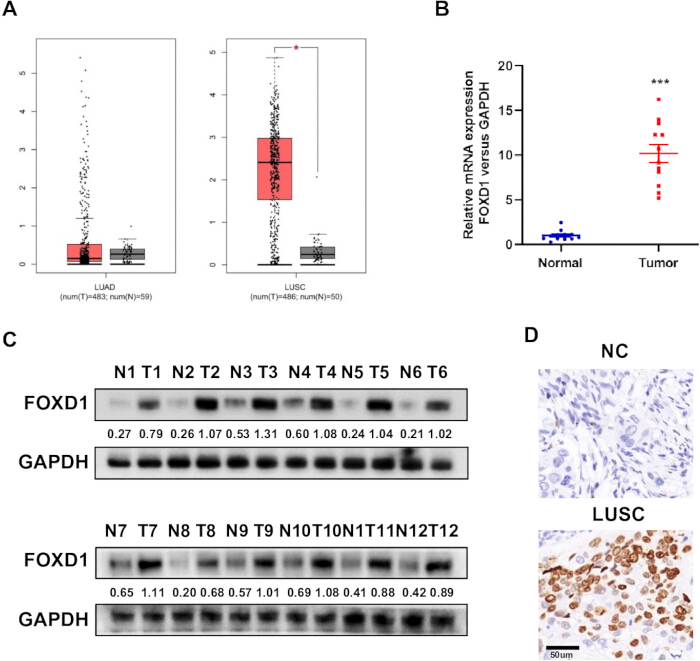
الشكل 1: تعبير FOXD1 في عينات سرطان الرئة البشرية. (Aمقارنة GEPIA لوفرة نسخ FOXD1 في سرطان الرئة الغدي (LUAD) وسرطان الرئة ذو الخلايا الحرشفية (LUSC) مقابل عينات الرئة الطبيعية.Bوفرة نسخ FOXD1 في 12 عينة مزدوجة من أنسجة سرطان الرئة الحرشفية و أنسجة غير ورمية مجاورة.ج) وفرة بروتين FOXD1 في نفس الأنسجة المزدوجة. (دتمثيل نموذجي للكشف المناعي النسيجي لـ FOXD1. أنسجة بشرية n = 12 زوجًا؛ في المختبر- لا يؤدي التكرار التقني للنمط إلى تغيير عدد المرضى. مقياس الشريط في اللوحة D = 50 µm. ***P < 0.001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
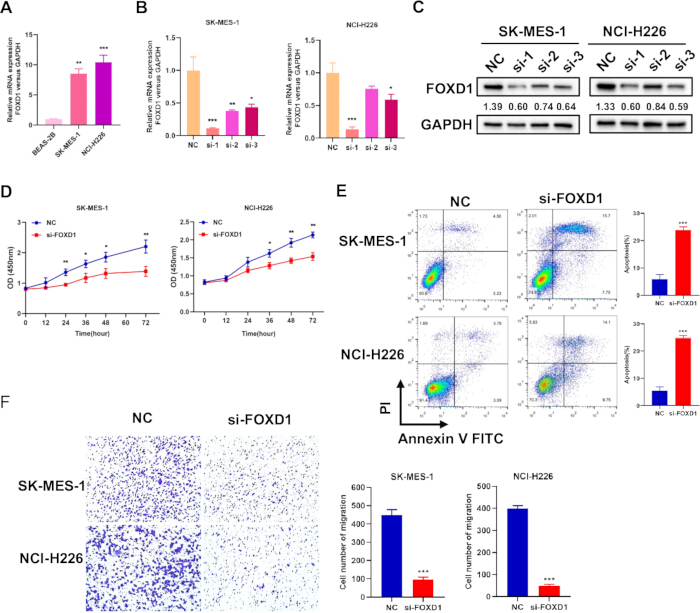
الشكل 2: تأثيرات إضعاف FOXD1 في خلايا SK-MES-1 وNCI-H226. (أ) وفرة النسخ الجينية لـ FOXD1 في خلايا BEAS-2B وSK-MES-1 وNCI-H226. (ب) فحص تفاعل البوليميراز المتسلسل الكمي العكسي (qRT-PCR) لثلاثة أشكال من الحموض النووية المتدخلة الصغيرة المستهدفة لـ FOXD1 بعد 48 ساعة من التحوير. (ج) فحص التحليل بالسوبرة الغربية لنفس الثلاثة أشكال من الحموض النووية المتدخلة الصغيرة المستهدفة لـ FOXD1. (د) فحص كاشف عد الخلايا-8 بعد إضعاف FOXD1. (هـ) تحليل موت الخلايا المبرمج باستخدام أنوكسين V–فلوريسئين أيزوثيرسيانات/بروبيديوم أيوديد بعد 48 ساعة. (و) قياس هجرة الخلايا باستخدام جهاز ترانسويل بعد 24 ساعة من زراعة الخلايا المحوّرة؛ تُعرض صور الحقل المرئي المحفوظة بدون شريط مقياس آني لأن بيانات المعايرة غير متوفرة. أُجريت ثلاث تجارب بيولوجية مستقلة. *P < 0.05؛ **P < 0.01؛ ***P < 0.001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
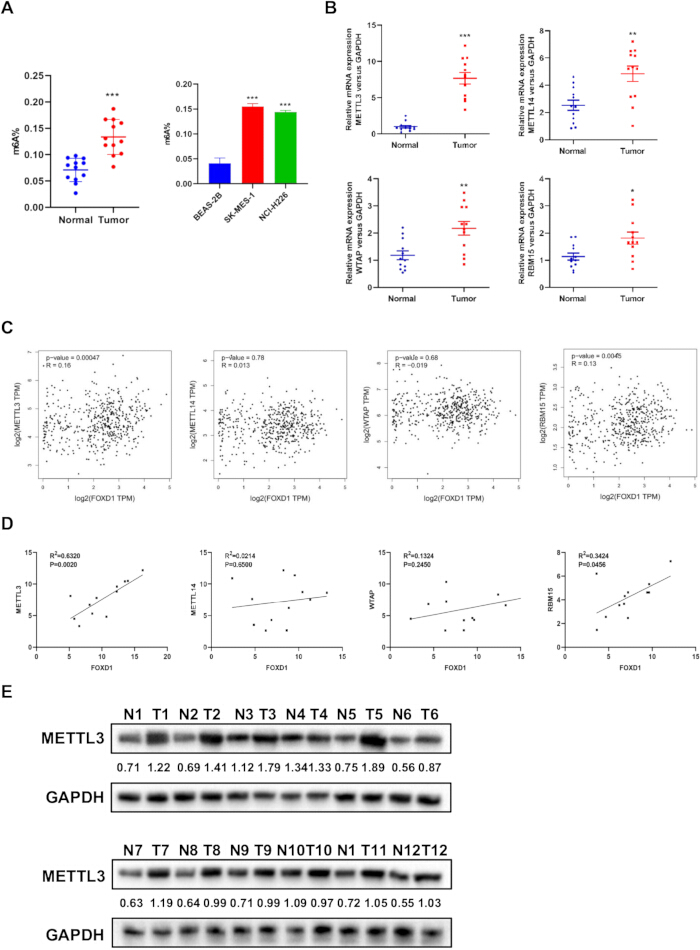
الشكل 3: الميثيل الأدينوسين العالمي من النوع N6 والارتباط بين METTL3 وFOXD1. (أ) إشارة m6A العالمية في الأنسجة المزدوجة وفي الخلايا BEAS-2B وSK-MES-1 وNCI-H226. (ب) نسخ الجينات METTL3 وMETTL14 وWTAP وRBM15 في 12 زوجًا من أنسجة سرطان الرئة الحرشفية (LUSC) والأنسجة المجاورة. (ج) ارتباطات GEPIA بين FOXD1 وكل إنزيم ميثيل. (د) الارتباطات بين نسخ الجين FOXD1 وإنزيمات الميثيل في 12 ورمًا من أورام سرطان الرئة الحرشفية (LUSC). (هـ) بروتين METTL3 في أنسجة سرطان الرئة الحرشفية (LUSC) والأنسجة المجاورة المزدوجة. عدد أنسجة الإنسان = 12 زوجًا؛ تمثل تجارب الخلايا ثلاث تجارب بيولوجية مستقلة. *P < 0.05؛ **P < 0.01؛ ***P < 0.001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
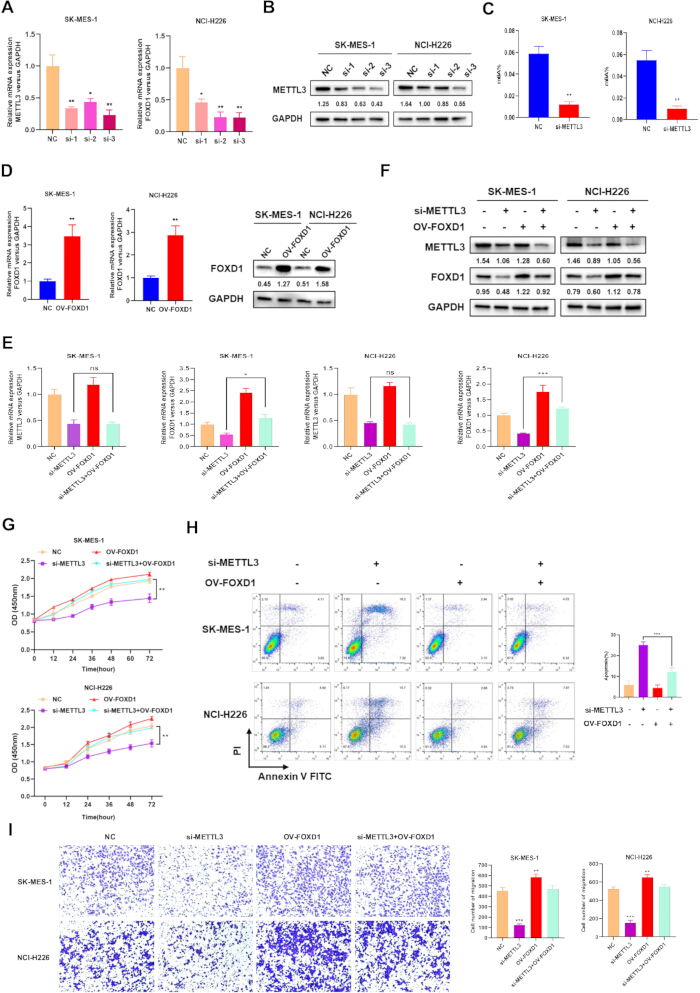
الشكل 4: إنقاص مستوى METTL3، واستعادة FOXD1، وظواهر الخلايا السرطانية الحرشفية الرئوية. (أ) فحص تفاعل البلمرة العكسي الكمي (qRT-PCR) لثلاثة أشكال من الأشكال الصغيرة المضادة للـ RNA المستهدفة لـ METTL3 بعد 48 ساعة من التحوير. (ب) فحص التحليل بالسوبرنة الغربية لنفس الأشكال الثلاثة الصغيرة المضادة للـ RNA المستهدفة لـ METTL3. (ج) إشارة m6A الشاملة بعد إنقاص مستوى METTL3. (د) وفرة نسخة وبروتين FOXD1 بعد الإفراط في التعبير عن FOXD1. (هـ) وفرة نسخة METTL3 وFOXD1 في الظروف الضابطة، وsi-METTL3، وov-FOXD1، وفي الحالة المدمجة si-METTL3 + ov-FOXD1، تم قياسها باستخدام تفاعل البلمرة العكسي الكمي (qRT-PCR). (و) وفرة بروتين METTL3 وFOXD1 في نفس مجموعات الإنقاذ، تم قياسها باستخدام التحليل بالسوبرنة الغربية. (ز) فحص كاشف عد الخلايا 8. (ح) موت الخلايا المبرمج بواسطة مطيافية تدفق الخلايا. (ط) انتقال الخلايا عبر غرفة ترانسويل. أُجريت ثلاث تجارب حيوية مستقلة. تشير الأرقام الموجودة أسفل أشرطة التحليل بالسوبرنة الغربية إلى نسب البروتين المستهدف/ GAPDH بعد التطبيع. ns، غير دال إحصائيًا؛ *P < 0.05؛ **P < 0.01؛ ***P < 0.001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
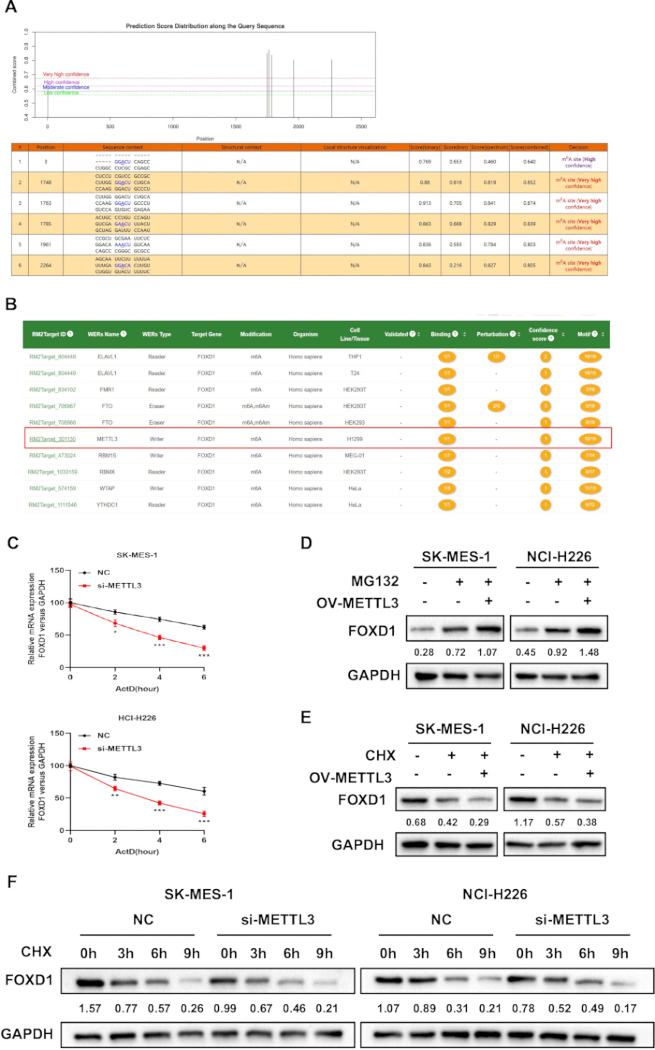
الشكل 5: يرتبط METTL3 بتنظيم النص الجيني والبروتين الخاص بـ FOXD1. (أ) مواقع الأدينوسين الممثيل N6 التي تنبأت بها أداة SRAMP ضمن النص الجيني لـ FOXD1. (ب) تنبؤ أداة m6A2Target بوجود METTL3 كمرشح لعامل كتابة مرتبط بـ FOXD1. (ج) وفرة mRNA لـ FOXD1 النسبية بعد علاج الأكتينوميسين D بتركيز 5 µg/mL في الخلايا الضابطة السلبية والخلايا المُعطّلة لـ METTL3 عند الزمن 0 ساعة، 2 ساعة، 4 ساعة، و6 ساعة. (د) وفرة بروتين FOXD1 في الخلايا الضابطة بالمتجه غير المعالجة، والخلايا الضابطة بالمتجه المعالجة بـ MG132، والخلايا المعبرة بنسب عالية عن METTL3 والمعتمة بـ MG132 (10 µM MG132). (هـ) وفرة بروتين FOXD1 في الخلايا الضابطة بالمتجه غير المعالجة، والخلايا الضابطة بالمتجه المعالجة بـ CHX، والخلايا المعبرة بنسب عالية عن METTL3 والمعتمة بـ CHX (20 µM CHX). (و) التعبير البروتيني لـ FOXD1 بعد علاج CHX بتركيز 20 µM لمدة 0 ساعة، 3 ساعات، 6 ساعات، و9 ساعات في الخلايا الضابطة السلبية والخلايا المُعطّلة لـ METTL3. استُخدم GAPDH كضابط تحميل. أُجريت تجارب الخلايا في ثلاث مكررات بيولوجية مستقلة. الصور الناتجة تمثل نموذجًا نموذجيًا؛ تشير الأرقام الموجودة أسفل الحزم إلى نسب FOXD1/GAPDH المعيّنة. *P < 0.05؛ **P < 0.01؛ ***P < 0.001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
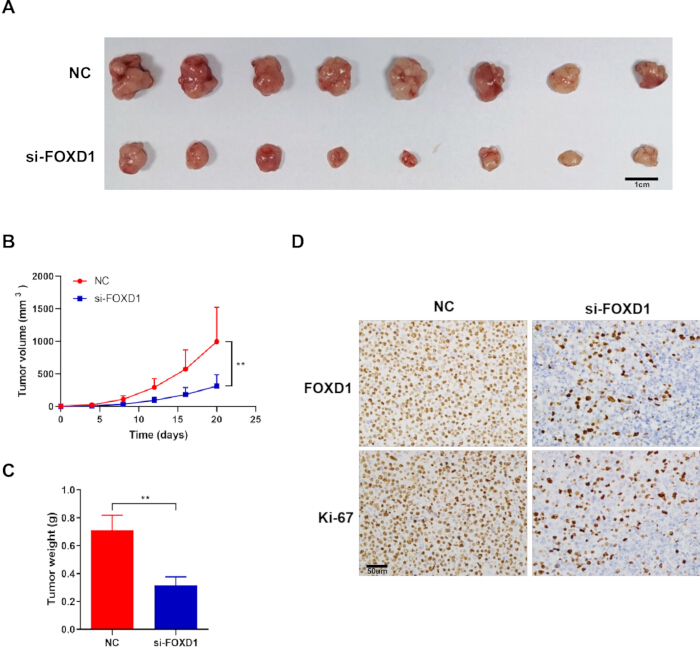
الشكل 6: يثبط إخماد FOXD1 نمو زراعة الأورام الغريبة SK-MES-1. (Aالأورام المستأصلة من مجموعتي الضبط السلبي وخفض FOXD1؛ شريط المقياس = 1 سم.Bقُيس نمو الورم كل 4 أيام على مدار 20 يومًا، بدءًا من أسبوع واحد بعد الزرع، مع جمع العينات في اليوم 27 بعد التلقيح.جوزن الورم عند الجمع.دتمثيل نموذجي للمناعة النسيجية لـ FOXD1 وKi-67 في نسيج الزرع الضربي؛ شريط المقياس = 50 µm. n = 8 فئران لكل مجموعة؛ **P < 0.01. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
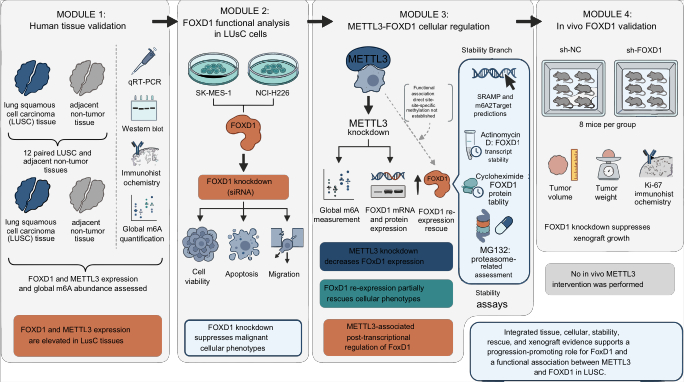
الشكل 7: تصميم الدراسة الشامل وحدود الأدلة. تم استخدام أنسجة LUSC المزدوجة (n = 12 زوجًا) وخطوط الخلايا لتحليل FOXD1 وMETTL3 والنمط العام لـ m6A؛ وتبع ذلك إجراء تعديلات وراثية وتجارب إنقاذ تلتها تجارب قياس القابلية للحياة، والانتحار الخلوي، والهجرة، والاستقرار. تم مراقبة نموذج زراعة خبيثة بخسارة تعبير FOXD1 (n = 8 فئران لكل مجموعة) على مدى 20 يومًا. يوضح المخطط الفرق بين أدلة METTL3 المعتمدة على الخلايا وأدلة FOXD1 المحددة في الجسم الحي، ويكشف عن ارتباط مباشر، وm6A محدد لموقع معين، وهوية قارئ m6A، ونشاط METTL3 في الجسم الحي باعتبارها جوانب لم يتم اختبارها. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| جين | الاتجاه | تسلسل (5′–3′) |
| FOXD1 | إلى الأمام | TCTGAGTAACGCGTTATGCTT |
| FOXD1 | معكوس | CGGAATCGGACGCAAGTCTT |
| GAPDH | إلى الأمام | GGAGCGAGATCCCTCCAAAAT |
| GAPDH | عكس | جغستغتغتشغتشغتشغتشغتشغتش |
| METTL14 | إلى الأمام | CTGAAAGTGCCGACAGCATTGG |
| METTL14 | عكس | CTCTCCTTCATCCAGATACTTACG |
| METTL3 | إلى الأمام | CCAGCACAGCTTCAGCAGTTCC |
| METTL3 | عكس | جـ-جـ-جـ-تي-جـ-جـ-أ-تي-جـ-أ-أ-جـ-أ-تي-أ-تي-جـ-أ-أ-د-أ-تي-جـ |
| RBM15 | إلى الأمام | جتتغتككجتتاتغتجغتغتتتاك |
| RBM15 | عكس | CACTTAAAACACCGGCATTGG |
| WTAP | إلى الأمام | جـ.سـ.أ.أ.كـ.أ.أ.كـ.أ.جـ.أ.جـ.أ.جـ.تـ.سـ.تـ.جـ.أ |
| WTAP | معكوس | CTGCTGGACTTGCTTGAGGTAC |
الجدول 1: تسلسلات أوليّات تفاعل البوليميراز المتسلسل العكسي الكمي. تُقدَّم التسلسلات بالاتجاه 5′–3′.
المناقشة
يدعم سير العمل الحالي دور FOXD1 في سرطان الخلايا الحرشفية الرئوي (LUSC) عبر أنسجة متطابقة، وخطين خلويين، ونموذج طعم غريب. وقد تبين أن مستويات FOXD1 كانت أعلى في عينات الأورام وخلايا LUSC، كما أدى استنفاده إلى تقليل الحيوية والهجرة مع زيادة موت الخلايا المبرمج. وتتماشى هذه النتائج مع التقارير التي تربط FOXD1 بالنمو، والغزو، والمقاومة العلاجية، والنتائج السلبية في عدة أنواع من السرطانات 10,11,12,13,21,22,23,24,25,26,27,28. كما أنها توسع الملاحظات السابقة حول LUSC من خلال ربط الأنماط الظاهرية الخلوية بتجربة طعم غريب تعتمد على تثبيط FOXD1.
ربطت تحليلات الأنسجة المزدوجة والخلايا بشكل أكبر بين وفرة FOXD1 وبين METTL3 ومستويات m6A الكلية. ارتفعت أربعة جينات من جينات الكتابة (writer genes) في 12 زوجاً من الأورام، ولكن أظهر METTL3 أقوى ارتباط إيجابي مع FOXD1. وفي الخلايا المستنبتة، أدى استنزاف METTL3 إلى خفض مستويات m6A الكلية ووفرة FOXD1، كما أدى إعادة تعبير FOXD1 إلى استعادة جزئية للنماذج الظاهرية المرتبطة بالحيوية والموت الخلوي المبرمج والهجرة. وتدعم هذه البيانات وجود علاقة وظيفية بين METTL3 وFOXD1 في الخلايا المختبرة، وهو ما يتوافق مع التأثير الواسع لتنظيم m6A على النماذج الظاهرية الخبيثة29,30,31,32,33,34,35,36.
تعد عدة نقاط في البروتوكول مهمة لضمان إمكانية تكرار النتائج. يجب التأكد من كفاءة التثبيط (Knockdown) في كل خط خلوي قبل إجراء المقايسات الوظيفية، كما يجب أن تتحقق ظروف الإنقاذ (rescue conditions) من استعادة FOXD1 دون تفسير البنية الجينية على أنها فرط تعبير لـ METTL3. يجب أن تستخدم معالجات Actinomycin D وCHX وMG132 التركيزات وأوقات أخذ العينات المحددة في البروتوكول. كما يجب التحكم في كثافة الخلايا، وتدرج المصل، ومجال التصوير الثابت في مقايسات Transwell. إذا قام الباحث بتكييف سير العمل، فقد يكون استخدام RNA قصير الشعر (shRNA) مستقر أو تحرير الجينوم مفضلاً للتجارب التي تجرى in vivo لفترات طويلة، ولكن هذه البدائل تتطلب تحققاً مستقلاً.
تتضمن هذه الدراسة عدة قيود؛ حيث شملت المجموعة البشرية 12 عينة مزدوجة ولم تكن مصممة لنمذجة النتائج. كما تم نقل حمض نووي ريبوزي متداخل صغير (siRNA) واحد مختار فقط إلى المقايسات الوظيفية، لذا لم يتم تحقيق التحقق من التأثيرات خارج الهدف المستقلة عن التسلسل. يقتصر تفسير تحليل لطخة ويسترن (Western-blot) على القيم المعيارية الموضحة في الأشكال؛ ولم يتم إجراء اختبار استدلالي بعدي. كما أن تنبؤات SRAMP وm6A2Target، وقياسات m6A الشاملة، ومقايسات الاستقرار لا تعد بديلاً عن الترسيب المناعي للـ RNA، أو الترسيب المناعي للـ RNA الميثيلي، أو الطفرات الموجهة للموقع، أو الإنقاذ الخاص ببروتين القارئ. لم يتم إحداث اضطراب في METTL3 in vivo، لذا لا يمكن لبيانات الطعم الغريب (xenograft) دعم أي ادعاء بخصوص METTL3 in vivo.
يجب أن تختبر الدراسات المستقبلية التثبيط الدوائي لـ METTL3، وتحديد مواقع m6A المرتبطة بـ FOXD1 والارتباط المباشر، وتحديد بروتين القارئ ذي الصلة، وتكرار استراتيجية الإنقاذ in vivo. كما سيلزم وجود مجموعة أكبر ومصنفة بشكل مستقل لتقييم النتائج السريرية. وفي نطاقها الحالي، تدعم الدراسة اعتبار FOXD1 منظمًا وظيفيًا لـ LUSC وتقدم أدلة خلوية على أن METTL3 يؤثر على وفرة FOXD1؛ لكنها لا تثبت مسارًا كاملاً لـ METTL3-m6A-reader-FOXD1.
الإفصاحات
يصرح المؤلفون بأنه لا يوجد لديهم أي تضارب في المصالح.
مساهمات المؤلفين:
ساهم كل من D.A. وQ.D. في جمع البيانات والحصول على المعلومات السريرية. وقام K.W. وS.F. بإجراء تجارب البيولوجيا الجزيئية وتحليل البيانات. وشاركت L.G. في تصميم الدراسة وتفسير البيانات. وأجرى H.Z. التحليل الإحصائي وساعد في التحقق من صحة البيانات. ونفذ Y.S. التجارب الحيوانية والتحليل الكيميائي النسيجي المناعي. وساهم Q.P. في فحوصات الهجرة وتوفير الموارد التجريبية. وتولى G.L. تصور الدراسة والإشراف عليها وصياغة المخطوطة. وقد راجع جميع المؤلفين المخطوطة ونقحوها ووافقوا عليها.
شكر وتقدير
يشكر المؤلفون كل من Zhe Tang وYan Zhang على المساعدة التقنية في تفاعل البوليميراز المتسلسل الكمي واللطخة الغربية، على التوالي، وYang Li للمساعدة في فحوصات حيوية الخلايا وموت الخلايا المبرمج. تم تمويل هذا البحث من قبل مؤسسة العلوم الطبيعية لمنطقة التبت ذات الحكم الذاتي (رقم XZ202001ZR0040G).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| نظام 7500 Fast Real-Time PCR | Applied Biosystems | 7500 Fast | تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR) (RRID: SCR_018051) |
| أكتينومايسين د (Actinomycin D) | Sigma-Aldrich | SBR00013 | مقايسة استقرار الحمض النووي الريبوزي (RNA)، 5 µg/mL |
| طقم كشف الموت الخلوي المبرمج Annexin V-FITC/PI | BD Biosciences | 556547 | قياس الموت الخلوي المبرمج بالتدفق الخلوي |
| فئران BALB/c العارية عديمة التيموس | بما أنه لا يوجد نص مصدر مقدم للترجمة، يرجى تزويدي بالنص الذي ترغب في ترجمته من الإنجليزية إلى العربية، وسأقوم بتنفيذه وفقاً للمعايير المهنية والعلمية المحددة في التعليمات. | نظرًا لعدم توفر نص مصدر للترجمة، يرجى تزويدي بالنص الإنجليزي الذي ترغب في ترجمته إلى اللغة العربية وفقًا للمعايير العلمية والمهنية المحددة. | طعم غريب تحت الجلد |
| BEAS-2B | بنك الخلايا التابع للأكاديمية الصينية للعلوم | https://www.cellosaurus.org/CVCL_0168 | مرجع الخلايا الظهارية القصبية غير الورمية؛ RRID: CVCL_0168 |
| طقم عد الخلايا-8 (Cell Counting Kit-8) | Beyotime | C0037 | حيوية الخلايا |
| البنفسج البلوري | لا ينطبق | بما أنه لم يتم توفير نص مصدر للترجمة، يرجى تزويدي بالنص الإنجليزي الذي ترغب في ترجمته إلى اللغة العربية وفقاً للمعايير العلمية والأكاديمية المحددة. | صباغة ترانسويل (Transwell)، ١٠ دقائق |
| سيكلوهيكسيميد | MedChemExpress | HY-12320 | مقايسات استقرار البروتين، 20 µM |
| طقم ركيزة DAB | نظرًا لعدم توفر نص مصدري للترجمة، يرجى تقديم النص الإنجليزي الذي ترغب في ترجمته إلى العربية وفقًا للمعايير العلمية والأكاديمية المحددة. | نظرًا لعدم توفر نص مصدر للترجمة، يرجى تزويدي بالنص الذي ترغب في ترجمته من الإنجليزية إلى العربية وفقًا للمعايير العلمية والأكاديمية المحددة في التعليمات. | تصوير الكيمياء النسيجية المناعية |
| وسط ديلبيكو المعدل إيجل | Gibco | 11995065 | زراعة الخلايا |
| كاشف التألق الكيميائي المعزز | Thermo Fisher Scientific | A38556 | الكشف بطريقة لطخة ويسترن |
| مصل جنين البقر | Gibco | 10091148 | مستنبت خلوي، 10% |
| مقياس التدفق الخلوي | لا ينطبق | لا يوجد نص قابل للترجمة. | قياس الموت الخلوي المبرمج |
| جسم مضاد FOXD1 | Thermo Fisher Scientific | PA5-27142 | لطخة ويسترن، 1:1,000؛ الكيمياء النسيجية المناعية |
| بنية الإفراط في تعبير FOXD1 | لا يوجد نص متاح للترجمة. يرجى تزويدي بالنص الذي ترغب في ترجمته. | لا ينطبق | إنقاذ FOXD1 |
| الأجسام المضادة لـ GAPDH | تكنولوجيا إشارات الخلايا | 5174 | ضابط تحميل تحليل لطخة ويسترن، 1:2,000 (RRID: AB_10622025) |
| GEPIA | جامعة بكين | http://gepia.cancer-pku.cn/ | استعلامات التعبير والارتباط؛ RRID: SCR_018294 |
| GraphPad Prism | برمجيات GraphPad | الإصدار 8 | التحليل الإحصائي؛ RRID: SCR_002798 |
| جسم مضاد لـ immunoglobulin G الأرنبي مقترن ببيروكسيداز الفجل الحار | بما أنك لم تقدم نصاً للمصدر، يرجى تزويدي بالنص الإنجليزي الذي ترغب في ترجمته وسأقوم بنقله إلى اللغة العربية وفقاً للمعايير المهنية والأكاديمية المحددة في تعليماتك. | لم يتم توفير نص للترجمة. يرجى تقديم النص المصدر باللغة الإنجليزية لبدء عملية الترجمة العلمية إلى اللغة العربية. | لطخة ويسترن، ساعة واحدة في درجة حرارة الغرفة |
| ImageJ | المعاهد الوطنية للصحة | https://imagej.nih.gov/ij/ | تكميم صور الهجرة؛ RRID: SCR_003070 |
| جسم مضاد Ki-67 | لا ينطبق | لا ينطبق | الكيمياء النسيجية المناعية للطعوم الغريبة |
| m6A2Target | مورد إلكتروني | http://m6a2target.canceromics.org/ | الارتباط المتوقع بين منظم m6A والهدف |
| جسم مضاد لبروتين Methyltransferase-like 3 | Proteintech | 15073-1-AP | لطخة ويسترن، 1:1,000؛ RRID: AB_2142033 |
| MG132 | MedChemExpress | HY-13259 | مقايسة تثبيط البروتيزوم، 10 µM |
| مقايسة لونية لـ N6-methyladenosine | Epigentek | P-9005-96 | قياس m6A الكلي |
| NCI-H226 | بنك الخلايا التابع للأكاديمية الصينية للعلوم | https://www.cellosaurus.org/CVCL_1544 | نموذج خلايا LUSC؛ معرف الموارد البحثية: RRID: CVCL_1544 |
| مجهر Olympus | Olympus | لم يتم تسجيل النموذج | تصوير ترانسويل (Transwell) |
| بنسلين-ستربتوميسين | Gibco | 10378016 | زراعة الخلايا، 1% |
| غشاء بولي فينيليدين فلورايد | Merck | IPVH00010 | نقل لطخة ويسترن |
| طقم كاشف النسخ العكسي PrimeScript | Takara | RR037A | تخليق الحمض النووي الريبوزي منقوص الأكسجين المتمم |
| مشروع R للحوسبة الإحصائية | مؤسسة R | https://www.r-project.org/ | التحليل الإحصائي؛ RRID: SCR_001905 |
| محلول التحلل الخاص بمقايسة الترسيب المناعي الإشعاعي | Beyotime | P0013B | استخلاص البروتين |
| RNAiso Plus | Takara | 9108 | استخلاص الحمض النووي الريبوزي (RNA) |
| كواشف siRNA | لا ينطبق | لا ينطبق | تثبيط تعبير FOXD1 وMETTL3؛ تم اختيار siRNA-1 |
| SK-MES-1 | بنك الخلايا التابع للأكاديمية الصينية للعلوم | https://www.cellosaurus.org/CVCL_0630 | نموذج خلايا وسرطان الرئة الحرشفية (LUSC) والطعم الغريب؛ RRID: CVCL_0630 |
| SRAMP | مورد إلكتروني | http://www.cuilab.cn/sramp | التنبؤ بمواقع m6A المرشحة في FOXD1 |
| مزيج TB Green PCR الرئيسي | Takara | RR820A | تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR) |
| كاشف عفن خلوي (Transfection reagent) | غير متاح | لم يتم تقديم نص لترجمته. يرجى تزويدي بالنص المصدر باللغة الإنجليزية للبدء في عملية الترجمة العلمية إلى اللغة العربية. | توصيل الـ siRNA والبلازميد |
| حواشيات ترانسويل (Transwell) | لا ينطبق | غير متاح | اختبار الهجرة الخلوية |
المراجع
- Li MY, Liu LZ, Dong M. Progress on pivotal role and application of exosome in lung cancer carcinogenesis, diagnosis, therapy and prognosis. Mol Cancer. 2021;20(1):22.
- Hirsch FR, et al. Lung cancer: current therapies and new targeted treatments. Lancet. 2017;389(10066):299-311.
- Li Y, et al. Transcriptomic and functional network features of lung squamous cell carcinoma through integrative analysis of GEO and TCGA data. Sci Rep. 2018;8(1):15834.
- Fu L, et al. The value of CEP55 gene as a diagnostic biomarker and independent prognostic factor in LUAD and LUSC. PLoS One. 2020;15(5):e0233283.
- Chen TJ, et al. MicroRNA-665 facilitates cell proliferation and represses apoptosis through modulating Wnt5a/β-catenin and Caspase-3 signaling pathways by targeting TRIM8 in LUSC. Cancer Cell Int. 2021;21(1):215.
- Chen C, et al. CXCL5 induces tumor angiogenesis via enhancing the expression of FOXD1 mediated by the AKT/NF-κB pathway in colorectal cancer. Cell Death Dis. 2019;10(3):178.
- Wu Q, et al. FOXD1-AS1 regulates FOXD1 translation and promotes gastric cancer progression and chemoresistance by activating the PI3K/AKT/mTOR pathway. Mol Oncol. 2021;15(1):299-316.
- Chen Y, Liang W, Liu K, Shang Z. FOXD1 promotes EMT and cell stemness of oral squamous cell carcinoma by transcriptional activation of SNAI2. Cell Biosci. 2021;11(1):154.
- Liang H, et al. FOXD1 is a prognostic biomarker and correlated with macrophages infiltration in head and neck squamous cell carcinoma. Biosci Rep. 2021;41(7):BSR20202929.
- Zhao YF, et al. FOXD1 promotes breast cancer proliferation and chemotherapeutic drug resistance by targeting p27. Biochem Biophys Res Commun. 2015;456(1):232-7.
- Nakayama S, et al. FOXD1 expression is associated with poor prognosis in non-small cell lung cancer. Anticancer Res. 2015;35(1):261-8.
- Li D, et al. FOXD1 promotes cell growth and metastasis by activation of vimentin in NSCLC. Cell Physiol Biochem. 2018;51(6):2716-2731.
- Chen C, et al. miR-30a-5p inhibits proliferation and migration of lung squamous cell carcinoma cells by targeting FOXD1. Biomed Res Int. 2020;2020:2547902.
- Chen XY, Zhang J, Zhu JS. The role of m(6)A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Jiang X, et al. The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021;6(1):74.
- Ma Z, Ji J. N6-methyladenosine (m6A) RNA modification in cancer stem cells. Stem Cells. 2020;38(12):1511-1519.
- Gao R, et al. m6A modification: a double-edged sword in tumor development. Front Oncol. 2021;11:679367.
- He L, et al. Functions of N6-methyladenosine and its role in cancer. Mol Cancer. 2019;18(1):176.
- Sun T, Wu R, Ming L. The role of m6A RNA methylation in cancer. Biomed Pharmacother. 2019;112:108613.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Sack LM, et al. Profound tissue specificity in proliferation control underlies cancer drivers and aneuploidy patterns. Cell. 2018;173(2):499-514.e23.
- Vazquez A, et al. Cancer metabolism at a glance. J Cell Sci. 2016;129(18):3367-73.
- Cai K, et al. FOXD1 facilitates pancreatic cancer cell proliferation, invasion, and metastasis by regulating GLUT1-mediated aerobic glycolysis. Cell Death Dis. 2022;13(9):765.
- Zhou L, et al. Down-regulation of miR-30a-5p is associated with poor prognosis and promotes chemoresistance of gemcitabine in pancreatic ductal adenocarcinoma. J Cancer. 2019;10(21):5031-5040.
- Pan F, Li M, Chen W. FOXD1 predicts prognosis of colorectal cancer patients and promotes colorectal cancer progression via the ERK 1/2 pathway. Am J Transl Res. 2018;10(5):1522-1530.
- Qiu S, et al. Diagnostic and prognostic value of FOXD1 expression in head and neck squamous cell carcinoma. J Cancer. 2021;12(3):693-702.
- Wu T, et al. miR-30e-5p-mediated FOXD1 promotes cell proliferation by blocking cellular senescence and apoptosis through p21/CDK2/Rb signaling in head and neck carcinoma. Cell Death Discov. 2023;9(1):295.
- Sun Q, et al. FOXD1 promotes dedifferentiation and targeted therapy resistance in melanoma by regulating the expression of connective tissue growth factor. Int J Cancer. 2021;149(3):657-674.
- Wang T, Kong S, Tao M, Ju S. The potential role of RNA N6-methyladenosine in cancer progression. Mol Cancer. 2020;19(1):88.
- Zeng C, Huang W, Li Y, Weng H. Roles of METTL3 in cancer: mechanisms and therapeutic targeting. J Hematol Oncol. 2020;13(1):117.
- Haussmann IU, et al. m6A potentiates Sxl alternative pre-mRNA splicing for robust Drosophila sex determination. Nature. 2016;540(7632):301-304.
- Liu N, et al. N(6)-methyladenosine-dependent RNA structural switches regulate RNA-protein interactions. Nature. 2015;518(7540):560-4.
- Kennedy EM, et al. Posttranscriptional m6A editing of HIV-1 mRNAs enhances viral gene expression. Cell Host Microbe. 2016;19(5):675-685.
- Lin S, et al. The m(6)A methyltransferase METTL3 promotes translation in human cancer cells. Mol Cell. 2016;62(3):335-345.
- Han J, et al. METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019;18(1):110.
- Li A, et al. Cytoplasmic m(6)A reader YTHDF3 promotes mRNA translation. Cell Res. 2017;27(3):444-447.