يصف هذا البروتوكول بناء وتقييم جزيئي لنظام إعادة تركيب متعدد الجينات وخالٍ من الواسمات. Escherichia coli سلالة مُصممة للدمج الكروموسومي للجينات المرتبطة بمقاومة المعادن الثقيلة وعزلها.
مقالة منهجية
دمج كاسيت متعدد الجينات في الكروموسوم لبكتيريا Escherichia coli بدون استخدام علامات من أجل تطوير المعالجة الحيوية للمعادن الثقيلة
في هذه المقالة
ملخص
الملخص
لا يزال التلوث بالمعادن الثقيلة يشكل تحدياً بيئياً كبيراً نظراً لاستمرارية الملوثات المعدنية وسميتها وتراكمها البيولوجي. وتقدم البكتيريا المعدلة وراثياً نهجاً محتملاً للمعالجة من المعادن الثقيلة؛ ومع ذلك، يمكن أن تفرض أنظمة التعبير المعتمدة على البلازميدات قيوداً مرتبطة بالحفاظ على البلازميد والاختيار باستخدام المضادات الحيوية. تصف هذه الدراسة بروتوكولاً لإنشاء سلالة E. coli مؤشبة متعددة الجينات وخالية من العلامات، مصممة للدمج الكروموسومي للجينات المرتبطة بمقاومة المعادن الثقيلة وعزلها. تم تصميم وتخليق كاسيت متعدد الجينات بطول 4,741 bp يتكون من cadD، cadA، والميتالوثيونين (mt)، جنباً إلى جنب مع نظام عرض سطحي لبروتين الغشاء الخارجي A البروتيني الدهني (Lpp-OmpA) وجين مراسل للبروتين الفلوري الأخضر (gfp) تحت تحكم محفز بيروفات ديهيدروجيناز (Ppdh) التأسيسي. تم استنساخ هذا البناء في ناقل الدمج pKIKOArsBKm وإدخاله إلى E. coli MG1655 باستخدام إعادة التركيب بوساطة lambda (λ) Red. بعد ذلك، تم استئصال كاسيت مقاومة الكاناميسين باستخدام نظام إعادة التركيب flippase–flippase recognition target (FLP-FRT). تم تقييم تجميع البناء والدمج الكروموسومي عن طريق تحليل إنزيمات القطع، وعزل البلازميد، وتضخيم تفاعل البوليميراز المتسلسل (PCR)، بينما تم تقييم فقدان مقاومة المضادات الحيوية عن طريق اختبار الحساسية للمضادات الحيوية. ووفر تضخيم قطع cadD، cadA، و mt المتوقعة من الحمض النووي الجينومي، جنباً إلى جنب مع عدم وجود حمض نووي بلازميدي قابل للكشف، دليلاً يتوافق مع الدمج الكروموسومي للكاسيت متعدد الجينات. ورغم أن هذا البروتوكول يضع إطاراً لبناء وتقييم السلالة المؤشبة جزيئياً، فإن التأكيد النهائي لموقع الدمج، والتعبير الجيني الوظيفي، والاستقرار الوراثي طويل الأمد، وأداء الامتصاص الحيوي للمعادن الثقيلة يتطلب مزيداً من التحقق التجريبي.
المقدمة
أصبح التلوث بالمعادن الثقيلة مصدر قلق بيئي كبير نظراً لثبات الملوثات المعدنية وعدم قابليتها للتحلل الحيوي وسميتها. وبخلاف الملوثات العضوية، تتراكم المعادن الثقيلة في النظم البيئية وتدخل السلسلة الغذائية عن طريق التراكم الحيوي والتضخم الحيوي، مما يشكل مخاطر جسيمة على الصحة البيئية والبشرية. وغالباً ما ترتبط تقنيات المعالجة التقليدية، بما في ذلك الترسيب الكيميائي والتبادل الأيوني والترشيح الغشائي، بتكاليف تشغيلية عالية، وكفاءة محدودة عند التركيزات المعدنية المنخفضة، وتوليد ملوثات ثانوية. وبناءً على ذلك، حظيت استراتيجيات المعالجة البيولوجية باهتمام متزايد كبدائل مستدامة بيئياً وفعالة من حيث التكلفة لإزالة المعادن الثقيلة1.
من بين هذه النهج البيولوجية، برز الامتصاص الحيوي البكتيري كتقنية واعدة لمعالجة المعادن الثقيلة. يتضمن الامتصاص الحيوي الالتقاط السلبي لأيونات المعادن بواسطة المواد البيولوجية من خلال التفاعلات الفيزيائية والكيميائية بين أيونات المعادن والمجموعات الوظيفية مثل مجموعات الكربوكسيل، والهيدروكسيل، والأمين، والفوسفات الموجودة على سطح الخلية الميكروبية2. وتسهل هذه التفاعلات إزالة المعادن من خلال آليات التبادل الأيوني، وتكوين المعقدات، والتناسق، والترسيب. وتعد البكتيريا مواد ممتصة حيوياً فعالة بشكل خاص نظراً لارتفاع نسبة مساحة سطحها إلى حجمها، ونموها السريع، وتنوع الكيمياء السطحية لخلاياها. وتعتمد كفاءة الامتصاص الحيوي البكتيري على عوامل متعددة، بما في ذلك نوع البكتيريا، وخصائص أيونات المعادن، وpH، ودرجة الحرارة، ووجود أيونات متنافسة3. وبالإضافة إلى الامتصاص السلبي، يمكن للبكتيريا إزالة المعادن الثقيلة بنشاط من خلال العزل داخل الخلايا، والتراكم الحيوي، والتمعدن الحيوي، وآليات إزالة السموم الأخرى، مما يعزز قدرتها على إزالة المعادن4.
يتم التوسط في تكيف البكتيريا مع البيئات الملوثة بالمعادن الثقيلة من خلال آليات مقاومة متنوعة، تشمل مضخات التدفق المرتبطة بالغشاء، والبروتينات الرابطة للمعادن، وأنظمة إزالة السموم الإنزيمية، ومسارات الأكسدة والاختزال التي تعمل مجتمعة على الحفاظ على التوازن الداخلي للمعادن داخل الخلية. وقد تم توصيف العديد من أوبرونات المقاومة للمعادن الثقيلة بشكل مكثف، بما في ذلك أنظمة mer، و chr، و ars، و cad ، وهي تمثل موارد جينية قيمة لهندسة الممتزات الحيوية البكتيرية. يقوم أوبرون mer بالتوسط في إزالة سمية الزئبق عن طريق اختزال Hg2⁺ السام إلى زئبق عنصري متطاير (Hg°)5، بينما يمنح أوبرون chr المقاومة للكرومات عن طريق اختزال Cr6⁺ إلى Cr3⁺ الأقل سمية 6. وبالمثل، يقوم أوبرون ars بإزالة سمية الزرنيخات من خلال الاختزال إلى الزرنيخيت متبوعاً بالتدفق النشط7. أما جين cadA ، الذي تم تحديده في Staphylococcus aureus RN4220 و Bacillus megaterium TWSL_4، فيقوم بتشفير P-type ATPase الذي يصدر أيونات الكادميوم بنشاط من السيتوبلازم، مما يقلل من السمية داخل الخلية ويساهم في مقاومة البكتيريا للمعادن8,9. وتعزز البروتينات الرابطة للمعادن، مثل الميتالوثيونينات والفيتوكيلاتينات، تحمل المعادن الثقيلة بشكل أكبر عن طريق عزل أيونات المعادن ومنع تفاعلها مع المكونات الخلوية الأساسية10.
أتاحت التطورات الحديثة في البيولوجيا التخليقية الهندسة العقلانية للممتزات الحيوية البكتيرية ذات القدرات المحسنة على ربط المعادن. وقد أظهرت الدراسات السابقة تحسناً في إزالة المعادن الثقيلة من خلال التعبير المفرط للبروتينات الرابطة للمعادن في Bacillus subtilis و Pseudomonas putida11، وتثبيت الخلايا البكتيرية داخل مصفوفات الألجينات أو الغشاء الحيوي لتحسين الاستقرار وإمكانية إعادة الاستخدام12، وإدخال ببتيدات تخليقية رابطة للمعادن في E. coli لزيادة الامتزاز الحيوي للزئبق والزرنيخ13. ورغم هذه التطورات، تعتمد معظم الممتزات الحيوية المهندسة على أنظمة تعبير قائمة على البلازميدات تتطلب اختياراً مستمراً بالمضادات الحيوية وتكون عرضة لعدم استقرار البلازميدات، والفقد الانعزالي، وتفاوت عدد نسخ الجينات، وزيادة العبء الأيضي. وتقلل هذه القيود من ملاءمتها للتطبيقات البيئية والصناعية حيث يكون الاستقرار الجيني طويل الأمد والسلامة الحيوية أمرين حاسمين.
وبناءً على ذلك، يتطلب التطوير الاستراتيجي للممتزات الحيوية البكتيرية دمج علوم الأحياء الدقيقة، والبيولوجيا الجزيئية، والبيولوجيا التركيبية، والهندسة البيئية. وقد ساهم التقدم في علوم الجينوم والبروتيوميات والميتابولوميات في تعزيز فهمنا لاستجابات البكتيريا للإجهاد الناجم عن المعادن الثقيلة، مما سهل تحديد جينات ومسارات تنظيمية جديدة لهندسة ممتزات حيوية محسنة.
على عكس النهج التقليدي القائم على البلازميد، تؤسس هذه الدراسة منصة هندسية لبناء سلالة E. coli مؤشبة متعددة الجينات، خالية من العلامات، ومدمجة في الكروموسوم، وتحمل جينات مرتبطة بمقاومة المعادن الثقيلة وعزلها. وتجمع استراتيجية الهندسة هذه بين إعادة التركيب بواسطة λ Red، واستئصال العلامة بوساطة FLP-FRT، وكاسيت متعدد الجينات تأسيسي، وتصميم للعرض السطحي قائم على Lpp-OmpA. وقد تضمن الكاسيت متعدد الجينات كل من cadD (619 bp)، و cadA (2,564 bp)، والميتالوثيونين (mt) (154 bp)، والتي تم اختيارها بناءً على أدوارها المبلغ عنها سابقاً في مقاومة المعادن الثقيلة وعزل المعادن. ونُظمت الجينات تحت المحفز التأسيسي Ppdh ، مع مواقع ربط ريبوسومية فردية، وتم دمج mt مع Lpp-OmpA بهدف التموضع السطحي. كما تم دمج جين مراسل gfp في الموضع المصب من البناء الجيني.
تم تصميم الكاسيت من أجل التكامل الكروموسومي في بكتيريا E. coli MG1655 بدلاً من الاستمرار في الاحتفاظ به على بلازميد متعدد النسخ. وقد تم اختيار هذه الاستراتيجية لإنشاء إطار هندسي قد يقلل من الاعتماد على صيانة البلازميد والاختيار المستمر باستخدام المضادات الحيوية. كما تم دمج عملية الاستئصال بوساطة FLP-FRT لعلامة مقاومة المضادات الحيوية القابلة للاختيار في سير العمل، واستُخدم اختبار الحساسية للمضادات الحيوية لتقييم النمط الظاهري الناتج. تركز الدراسة الحالية على تجميع البنى الجينية والتقييم الجزيئي للسلالة المؤتلفة. أما الاستقرار الجيني على المدى الطويل، والتعبير الوظيفي للجينات المدمجة، وتمركز البروتين، وإزالة المعادن الثقيلة، والأداء البيئي فلم يتم تقييمها وتتطلب مزيداً من التحقق التجريبي.
يستهدف هذا البروتوكول الباحثين في مجالات البيولوجيا الجزيئية، والتكنولوجيا الحيوية الميكروبية، والبيولوجيا التخليقية الذين يهدفون إلى إنشاء سلالات بكتيرية مدمجة جينياً في الكروموسومات ومتعددة الجينات وخالية من العلامات. وتعد هذه الطريقة مناسبة بشكل خاص للهندسة الوراثية على النطاق المختبري والتقييم الجزيئي لسلالات E. coli المعاد تركيبها والمصممة لأبحاث المعالجة الحيوية للمعادن الثقيلة مستقبلاً، بدلاً من التطبيق البيئي المباشر.
البروتوكول
أُجريت جميع التجارب وفقاً لإرشادات السلامة البيولوجية المختبرية المؤسسية واللوائح المعمول بها للتعامل مع الكائنات الحية الدقيقة المعدلة وراثياً. جميع المواد والبرمجيات المستخدمة في الدراسة الحالية مدرجة في جدول المواد.
1. تصميم وتحليل الـ in silico للبنية متعددة الجينات.
- اختيار جينات مقاومة المعادن الثقيلة.
- اختر جينات مقاومة المعادن الثقيلة cadD (619 bp)، وcadA (2,564 bp)، والميتالوثيونين (mt; 154 bp)، والتي تم تحديدها مسبقاً من سلالات Staphylococcus epidermidis TWSL_17، وBacillus megaterium TWSL_4، وStaphylococcus warneri TWSL_6 على التوالي.
- استرجع تسلسلات النيوكليوتيدات لـ cadD وcadA وmt من قاعدة بيانات NCBI GenBank باستخدام أرقام الوصول MK900473.1 وMK327282.1 وMK900456.1 على التوالي.
ملاحظة: تم اختيار هذه الجينات بناءً على التوصيف السابق لسلالات البكتيريا المصدر فيما يتعلق بتحمل المعادن الثقيلة وإزالتها، ومصادر تسلسلات النيوكليوتيدات لكل عنصر وراثي مدمج في بنية الماص الحيوي مدرجة في الجدول 1.
- إجراء تحليل in silico للجينات المختارة والبروتينات المشفرة.
- استورد تسلسلات النيوكليوتيدات لـ cadD وcadA وmt إلى البرنامج (على سبيل المثال SnapGene) وقم بتحليل التسلسلات المشفرة.
- ترجم تسلسلات النيوكليوتيدات إلى تسلسلات الأحماض الأمينية المقابلة لها باستخدام خادم الترجمة ExPASy.
- أرسل تسلسلات الأحماض الأمينية المتوقعة لـ CadD وCadA وMt إلى I-TASSER وتوقع بنيات البروتين ثلاثية الأبعاد ومواقع ربط اللجينات المحتملة.
- حلل تسلسلات بروتين CadD وCadA وMt باستخدام خادم TMHMM للتنبؤ بنطاقات عبر الغشائية.
- حلل تسلسلات البروتين باستخدام خادم ExPASy TMPRED للتنبؤ بملفات الكره للماء والمناطق المرتبطة بالغشاء.
ملاحظة: سجل بقايا ربط اللجينات المتوقعة، والمعاملات البنيوية، والنطاقات عبر الغشائية، وملفات الكره للماء من أجل التفسير اللاحق للوظائف المتوقعة وتموضع البروتينات المشفرة.
- تصميم الكاسيت متعدد الجينات.
- صمم كاسيت متعدد الجينات بطول 4,741-bp يحتوي على محفز أوبيرون بيروفات ديهيدروجينيز التأسيسي (Ppdh)، وcadD، وcadA، وLpp-OmpA، وmt، والجين المراسل gfp.
- ضع الجينات المختارة في اتجاه المصب من محفز Ppdh التأسيسي وادمج موقع ربط الريبوسوم (RBS; 5′-AGGAGG-3′) في اتجاه المنبع من كل تسلسل مشفر.
- قم بدمج تسلسل الميتالوثيونين مع تسلسل Lpp-OmpA لإنتاج مكون Lpp-OmpA-Mt المصمم لتموضع الميتالوثيونين في الغشاء الخارجي للبكتيريا.
- ادمج gfp في اتجاه المصب من الجينات المرتبطة بالمعادن الثقيلة ليكون مراسلاً للتقييم اللاحق للتعبير عن البنية.
- تحقق من التوجه، ومواضع النيوكليوتيدات، والتنظيم العام للعناصر الوراثية في البنية النهائية بطول 4,741-bp باستخدام SnapGene.
- تخليق واستنساخ البنية متعددة الجينات.
- أرسل البنية متعددة الجينات النهائية بطول 4,741-bp للتخليق التجاري والاستنساخ في ناقل pET-21a بين موقعي القطع BamHI وXhoI.
- عند استلام بنية pET-21a المؤتلفة، أعد تكوين البلازميد وفقاً لتعليمات المورد ثم ابدأ بعملية التحويل إلى E. coli BL21(DE3).
ملاحظة: تم استخدام E. coli BL21(DE3) للتكاثر الأولي للبنية متعددة الجينات المصنعة تجارياً والمقدمة في ناقل التعبير pET-21a. ورغم أن BL21(DE3) يُستخدم أساساً للتعبير عن البروتينات المؤتلفة، إلا أنه متوافق نمطياً مع pET-21a وقد استُخدم بنجاح في هذه الدراسة. وبدلاً من ذلك، يمكن استخدام سلالات استنساخ مخصصة مثل E. coli DH5α أو TOP10 للتكاثر الأولي للبلازميد، حيث لا يتطلب الأمر التعبير عن T7 RNA polymerase في هذه المرحلة.
2. إنشاء كاسيت الامتصاص الحيوي متعدد الجينات.
- تحويل البنية المُخلّقة إلى *E. coli* BL21(DE3).
- إذابة التجميد *E. coli* خلايا BL21(DE3) المختصة الخلايا على الثلج.
- أضف 10-100 نانوجرام من بلازميد pET-21a المأشوب المُصنَّع الذي يحتوي على بنية الممتز الحيوي إلى 50 µL من E. coli خلايا BL21(DE3) المختصة. اخلط المحتويات بلطف دون تكرار عملية السحب بالماصة.
- تُحضن معلق الخلايا على الثلج لمدة 30 دقيقة.
- عرض الخلايا لصدمة حرارية عند 42 °C لمدة 45 ثانية.
- انقل الأنابيب فوراً إلى الثلج واتركها للحضانة لمدة دقيقتين.
- أضف 500 µL من... المسخن مسبقاً (37 °C)، ووسط SOC معقم (وسط فائق المثالية مع كابح تقويض) خالٍ من المضادات الحيوية. تُحضن المزرعة عند 37 °C مع الرج (180 دورة في الدقيقة) لمدة ساعة واحدة للسماح بالاستعادة.
- انتشار 100 µL للمزرعة المحولة على أطباق آغار LB (لوريا-بيرتاني) المحتوية على الأمبيسيلين (100 µg/mL). تُحضن الأطباق لمدة 16-18 ساعة عند 37 °C.
- التحقق من المحولات الإيجابية التي تحمل البلازميد المؤتلف.
- اختر مستعمرة واحدة منفصلة جيداً من طبق الآجار الانتقائي، وقم بتلقيحها في 5 مل من مرق LB المحتوي على الأمبيسيلين (100 µg/mL).
- قم بتحضين المزرعة لمدة 16-18 ساعة عند 37 °C مع الرج (180 دورة في الدقيقة).
- اعزل الحمض النووي البلازميدي (plasmid DNA) من المزرعة البكتيرية التي نمت لمدة تتراوح بين 16 و18 ساعة.
- انقل 5 مل من مزرعة بكتيرية نمت لمدة 16-18 ساعة إلى أنبوب طرد مركزي، ثم احصد الخلايا عن طريق الطرد المركزي بسرعة 11,000 × غ لمدة دقيقة واحدة. تخلص من الطافي تماماً.
- أعد تعليق كتلة الخلايا المترسبة جيداً في 250 µL من محلول ET المنظم المبرد بالثلج.
- أضف 250 µL من محلول التحلل (lysis buffer) المُحضّر حديثاً، ثم اخلط المكونات برفق عن طريق قلب الأنبوب عدة مرات (تجنب استخدام جهاز الرج vortex). احضن الخليط على الثلج لمدة 5 دقائق.
- أضف 300 µL من محلول التعادل، ثم يُمزج بلطف عن طريق قلب الأنبوب عدة مرات (تجنب استخدام جهاز الرج vortex).
- قم بطرد الخليط مركزياً عند 11,000 × جـ لمدة 10 دقائق، ثم ينقل الطافي بعناية إلى أنبوب طرد مركزي دقيق جديد دون تعكير الراسب.
- أضف الفينول المتوازن بمحلول TE إلى الطافي الذي تم جمعه بنسبة حجمية تبلغ 1:1 وامزجهما جيداً. ثم قم بالطرد المركزي عند 11,000 × ج لمدة 10 دقائق، ثم انقُل الطبقة المائية العلوية بعناية إلى أنبوب طرد مركزي دقيق جديد دون المساس بالسطح الفاصل.
تنبيه: مادة الفينول مادة مسببة للتآكل وشديدة السمية، ويمكن أن تسبب حروقاً كيميائية شديدة. يجب التعامل مع جميع المحاليل التي تحتوي على الفينول داخل خزانة استخلاص من الأدخنة الكيميائية معتمدة، مع ارتداء معدات الوقاية الشخصية المناسبة. - أضف الإيثانول المطلق بحجم يعادل ضعف حجم الطور المائي المسترجع، يليه 0.1 من حجم خلات الصوديوم بتركيز 0.1 عياري. اخلط المزيج جيداً وحضنه عند درجة حرارة −20 °C لمدة 15 دقيقة للسماح بترسيب الحمض النووي (DNA).
- قم بطرد العينة مركزياً عند 11,000 × ج لمدة 20 دقيقة. قم بإزالة الطافي بعناية دون تحريك كتلة الحمض النووي (DNA pellet).
- اشطف راسب الحمض النووي (DNA) باستخدام إيثانول بتركيز 70% (حجم/حجم)، ثم قم بالطرد المركزي لإعادة ترسيب الحمض النووي. أزل الإيثانول بعناية واترك الراسب ليجف في الهواء.
- أذب كريّة الحمض النووي (DNA) المجففة في 20 µL من محلول TE المنظم أو ماء خالٍ من النوكلياز.
نقطة توقف: يُحفظ الحمض النووي البلازميدي المعزول في درجة حرارة −20 °C إلى حين الحاجة إليها لإجراء الهضم بإنزيم التقييد والتحقق من البلازميد المؤتلف.
- أكد سلامة البلازميد المعزول عن طريق الهضم بإنزيمات التقييد.
- قم بتحضير 50 µL تفاعل هضم بالإنزيمات القاطعة في أنبوب طرد مركزي دقيق معقم يحتوي على 500 نانوغرام من الحمض النووي البلازميدي، 5 µL من 10× محلول منظم لإنزيم القطع، و10 وحدات من كل من BamHI وXhoI، وماء خالٍ من النوكلييز حتى الوصول إلى حجم نهائي قدره 50 µL.
ملاحظة: تم اختيار BamHI وXhoI لأن مواقع القطع هذه استُخدمت لاستنساخ كاسيت جين الممتز الحيوي المُصنّع في ناقل pET-21a.
- قم بتحضير 50 µL تفاعل هضم بالإنزيمات القاطعة في أنبوب طرد مركزي دقيق معقم يحتوي على 500 نانوغرام من الحمض النووي البلازميدي، 5 µL من 10× محلول منظم لإنزيم القطع، و10 وحدات من كل من BamHI وXhoI، وماء خالٍ من النوكلييز حتى الوصول إلى حجم نهائي قدره 50 µL.
- يُحضن خليط التفاعل عند 37 °C لمدة ساعة واحدة.
- افصل قطع الحمض النووي (DNA) المهضومة وقيمها باستخدام الرحلان الكهربائي لهلام الأغاروز للتحقق من وجود كاسيت جين الامتزاز الحيوي وحجمه المتوقع.
- قم بتحضير محلول أغاروز بتركيز 1% (وزن/حجم) باستخدام 100 مل من 1× محلول التخزين المنظم TAE.
- سخِّن معلق الأجاروز في فرن ميكروويف حتى يذوب الأجاروز تماماً ويصبح المحلول رائقاً. برّد الأجاروز المنصهر إلى حوالي 60 °C.
- أضف 10× صيغة DNA Safe Stain إلى الأجاروز المنصهر والمبرد للوصول إلى تركيز نهائي قدره 1×امزج بلطف لتجنب تكون فقاعات هوائية.
- صُبَّ خليط الأغاروز في صينية صب الهلام التي تحتوي على مشط مناسب. تخلص من فقاعات الهواء المرئية واترك الهلام يتصلب تماماً في درجة حرارة الغرفة.
- انقل الهلام المتصلب إلى غرفة الترحيل الكهربائي وأضف كمية كافية من 1× محلول TAE المنظم للتشغيل لتغطية الهلام. أزل المشط بعناية.
- امزج 5 µL لكل عينة DNA بواسطة 1 µL من 6× محلول تحميل الحمض النووي (DNA loading buffer)، ثم تحميل الخليط في آبار منفصلة.
- أجرِ عملية الرحلان الكهربائي عند جهد 100 فولت لمدة 40 دقيقة، أو حتى يتم تحقيق الفصل الكافي لقطع الحمض النووي DNA.
- قم بتصوير حزم الحمض النووي (DNA) باستخدام جهاز عرض الأشعة فوق البنفسجية (UV transilluminator)، وسجل صورة الهلام باستخدام نظام توثيق الهلام المناسب.
تنبيه: يمكن أن تسبب الأشعة فوق البنفسجية إصابات في العين والجلد. استخدم الدرع الواقي ومعدات الوقاية المناسبة من الأشعة فوق البنفسجية عند تشغيل جهاز التصوير الضوئي بالأشعة فوق البنفسجية.
ملاحظة: قم بتضمين عينة من بلازميد غير مهضوم كعينة ضابطة للتحقق من الهضم الكامل بواسطة إنزيم التقييد على هلام الأجاروز.
- يُحفظ السلالة المؤتلفة المؤكدة.
- قم بتلقيح مستعمرة مؤكدة من النوع المأشوب في 5 مل من مرق LB المحتوي على الأمبيسيلين (100 µg/mL) وتحضين لمدة 16-18 ساعة عند 37 °C مع الرج (180 دورة في الدقيقة).
- امزج المزرعة النامية لمدة 16-18 ساعة مع الجلسرول المعقم للحصول على تركيز نهائي من الجلسرول بنسبة 15% (حجم/حجم).
- قسّم المخزون الجليسرولي إلى حصص متساوية في أنابيب تجميد معقمة واحفظها عند درجة حرارة −80 °C.
نقطة توقف: تُخزن مخزونات الجلسرول عند −80 °C للحفظ طويل الأمد قبل المضي قدماً في عملية التكامل الكروموسومي.
3. استنساخ كاسيت المادة الماصة الحيوية في ناقل التكامل الكروموسومي (pKIKOArsBKm) والدمج في جينوم المضيف (E. coli MG1655)
- استنسخ كاسيت جين الامتصاص الحيوي في ناقل الدمج pKIKOArsBKm.
- قم بهضم البلازميد المأشوب pET-21a الذي يحمل كاسيت جين الامتصاص الحيوي، وناقل الدمج pKIKOArsBKm، كل على حدة باستخدام إنزيمي SacI و BamHI.
- قم بتحضير 50 µL تفاعل هضم بتقييد يحتوي على 500 نانوجرام من الحمض النووي البلازميدي، 1× منظم إنزيم القطع، و1 وحدة من كل من SacI وBamHI، وماء خالٍ من النوكلياز حتى حجم نهائي قدره 50 µLقم بحضن خليط التفاعل عند 37 °C لمدة ساعة واحدة.
- افصل قطع الحمض النووي (DNA) المهضومة بواسطة إنزيم القطع باستخدام الرحلان الكهربائي لهلام الأغاروز، كما هو موضح في الخطوة 2.2.6.
- استأصل الحزم المقابلة لكاسيت جين الممتز الحيوي بحجم 4,741 زوج قاعدي وناقل pKIKOArsBKm الخطي. انقل كل شريحة هلام مستأصلة إلى أنبوب طرد مركزي دقيق موزون مسبقاً.
ملاحظة: قلل من تعريض قطع الحمض النووي (DNA) المستهدفة للأشعة فوق البنفسجية أثناء عمليتي التصوير والاستئصال. - قم بتنقية كاسيت جين الممتز الحيوي المستأصل وناقل pKIKOArsBKm المخطّي من هلام الأجاروز.
- زن الأنبوب الذي يحتوي على شريحة الهلام، واحسب كتلة الأغاروز المستأصل بطرح وزن الأنبوب الفارغ.
- أضف 1× محلول TE المنظم بحجم يعادل خمسة أضعاف كتلة شريحة الهلام، باستخدام نسبة من 5 µL من محلول TE المنظم لكل 1 ملجم من الآغاروز (على سبيل المثال، أضف 500 µL من محلول TE المنظم إلى شريحة هلام بوزن 100 ملجم).
- يُحضن الأنبوب في حمام مائي عند 65 °C حتى يذوب الأغاروز تماماً. اترك العينة لتبرد حتى تصل إلى درجة حرارة الغرفة قبل البدء في عملية الاستخلاص بالفينول.
- اتبع الخطوات من 2.2.3.6 إلى 2.2.3.10 لإجراء استخلاص الفينول وترسيب الحمض النووي DNA لقطع DNA المستهدفة.
نقطة توقف: يُحفظ الحمض النووي (DNA) المُنقى عند درجة حرارة −20 °C حتى وقت الحاجة إليها في عمليات الاستنساخ أو الربط اللاحقة.
- قم بربط كاسيت جين الماص الحيوي المُنقى في ناقل pKIKOArsBKm المخطط (linearized) باستخدام إنزيم T4 DNA ligase، وبنسبة كتلة للمُدرج إلى الناقل تبلغ 3:1 تقريبًا.
- قم بتحضير 10 µL تفاعل ربط يحتوي على 150 نانوغرام من كاسيت جين الممتز الحيوي المُنقّى، و49.2 نانوغرام من ناقل pKIKOArsBKm الخطي، 1 µL من منظم T4 DNA ligase بتركيز 10X، و3 وحدات (U) من إنزيم T4 DNA ligase. أضف ماءً خالياً من النوكلياز حتى يصل الحجم النهائي إلى 10 µLمع الحفاظ على نسبة كتلية بين القطعة المدرجة والناقل تبلغ 3:1 تقريباً.
- امزج تفاعل الخليط برفق باستخدام الماصة، ثم حضّنه لمدة 16-18 ساعة عند 4 °C.
- تحويل 5 µL من خليط تفاعل الربط إلى *E. coli* Pir1 خلايا.
- إذابة من التجميد E. coli خلايا Pir1 المختصة على الثلج.
- أضف 5 µL من خليط تفاعل الربط إلى 50 µL من *E. coli* خلايا Pir1 المختصة. اخلط المحتويات بلطف دون تكرار عملية السحب بالماصة.
- تُحفظ معلق الخلايا على الثلج لمدة 30 دقيقة.
- عرّض الخلايا لصدمة حرارية عند 42 °C لمدة 45 ثانية.
- أعد الأنابيب فوراً إلى الثلج وحافظ عليها هناك لمدة دقيقتين.
- أضف 500 µL من [مادة] معقمة ومسخنة مسبقاً (37 °Cوسط SOC الغذائي بدون مضادات حيوية. تُترك الخلايا لتتعافى لمدة ساعة واحدة عند 37 °C مع الرج بسرعة 180 دورة في الدقيقة.
- طبق 100 µL مزيج التحول على Agar LB يحتوي على الكاناميسين (50 µg/mL) باستخدام ناشر معقم. تُحضن الأطباق عند 37 °C لمدة تتراوح بين 16 و18 ساعة.
- اختر مستعمرات معاد تركيبها معزولة جيداً ومقاومة للكاناميسين من أطباق أغار LB.
- تحقق من وجود بلازميد الدمج المؤتلف عن طريق عزل البلازميد كما هو موضح في الخطوة 2.2.3، يليه الفصل الكهربائي بهلام الأجاروز كما هو موضح في الخطوة 2.2.6.
نقطة توقف: تُحفظ تفاعلات الربط المكتملة عند درجة حرارة −20 °C حتى وقت الحاجة إليها لإجراء عملية التحول والتحقق اللاحقة لبنية pKIKOArsBKm المعاد تركيبها.
- قم بهضم البلازميد المأشوب pET-21a الذي يحمل كاسيت جين الامتصاص الحيوي، وناقل الدمج pKIKOArsBKm، كل على حدة باستخدام إنزيمي SacI و BamHI.
- تحويل ناتج الربط الذي يحتوي على بنية pKIKOArsBKm المؤتلفة إلى *E. coli* MG1655.
- تجهيز λ خلايا مضيفة ذات إعادة تركيب Red.
- تحضير الخلايا المختصة كيميائياً *E. coli* خلايا MG1655.
- اختر مستعمرة مفردة ومعزولة جيداً من E. coli سلالة MG1655 من طبق أغار LB وتلقيحها في 5 مل من مرق LB. تُحضن المزرعة عند 37 °C لمدة 16-18 ساعة مع الرج.
- انقل 0.5 مل من المزرعة التي تم تحضيرها طوال الليل إلى 50 مل من وسط Super Optimal Broth (SOB) المعقم. قم بتحضين المزرعة عند 37 °C مع الرج بسرعة 180 دورة في الدقيقة حتى تصل الكثافة الضوئية (OD)₆₀₀ يصل إلى 0.35–0.45.
- انقل المزرعة فوراً إلى حمام ثلجي وبرّدها جيداً.
- انقل المزرعة المبردة إلى أنبوب طرد مركزي معقم ومبرد مسبقًا سعة 50 مل، ثم قم بإجراء الطرد المركزي عند 10,000 × ج لمدة 10 دقائق عند 4 °C.
- أزل الطافي بعناية، ثم أعد تعليق كتلة الخلايا بلطف في 20 مل من الماء منزوع الأيونات والمبرد في الثلج.
- قم بطرد معلق الخلايا مركزياً عند 10,000 × جـ لمدة 10 دقائق عند 4 °Cتخلص من الطافي بعناية.
- أعد تعليق كتلة الخلايا برفق في 2 مل من كلوريد الكالسيوم 0.1 مولار المبرد بالثلج، واحفظ المعلق على الثلج لمدة 30 دقيقة.
- قم بطرد المعلق مركزياً عند 10,000 × ج لمدة 5 دقائق عند 4 °C، ثم قم بإزالة السائل الطافي بعناية.
- أعد تعليق كتلة الخلايا النهائية برفق في 1 مل من محلول CaCl2 بتركيز 0.1 مولار المبرّد على الثلج.₂صرف 80 µL حصص من الخلايا ذات الكفاءة الكيميائية E. coli خلايا MG1655 في أنابيب طرد مركزي دقيقة معقمة ومبردة مسبقاً. استخدم الخلايا ذات الكفاءة الكيميائية *E. coli* خلايا MG1655 فوراً من أجل التحول أو تخزين الحصص في درجة حرارة −80 °C حتى وقت الاستخدام.
- تحويل الخلايا ذات الكفاءة الكيميائية *E. coli* خلايا MG1655 مع الـ λ بلازميد إعادة التركيب Red pKD46 باستخدام إجراء التحول بالصدمة الحرارية.
- أضف 100 نانوغرام من بلازميد pKD46 إلى 80 µL من أنبوب طرد مركزي دقيق مبرد يحتوي على خلايا كفؤة كيميائياً *E. coli* خلايا MG1655. اخلط المحتويات برفق دون تكرار السحب بالماصة.
- يُحضن معلق الخلايا على الثلج لمدة 30 دقيقة.
- عرض الخلايا لصدمة حرارية عند 42 °C لمدة 45 ثانية.
- انقل الأنابيب فوراً إلى الثلج واتركها هناك لمدة دقيقتين.
- أضف 500 µL من وسط SOC المعقم الخالي من المضادات الحيوية. تُحضن المزرعة عند 30 °C مع الرج (180 دورة في الدقيقة) لمدة ساعة واحدة للسماح بالاستشفاء.
- نشر 100 µL للمزرعة المحولة على أطباق أغار LB تحتوي على الأمبيسيلين (100 µg/mL). تُحضن الأطباق لمدة تتراوح بين 16 و18 ساعة عند 30 °C.
ملاحظة: حافظ على *E. coli* سلالة MG1655(pKD46) عند 30 °C حتى يتم استخدامه في الخطوة 3.2.2 للحفاظ على بلازميد pKD46 الحساس للحرارة.
- تحضير الخلايا المختصة كيميائياً *E. coli* خلايا MG1655.
- تحضير الخلايا ذات الكفاءة الكهربائية E. coli خلايا MG1655(pKD46).
- قم بتلقيح 1 مل من مزرعة نمت لمدة 16-18 ساعة E. coli مزرعة MG1655(pKD46) في دورق إرلنماير يحتوي على 250 مل من مرق LB المضاف إليه الأمبيسيلين (100 µg/mL) وتحضين المزرعة عند 30 °C مع الرج بسرعة 180 دورة في الدقيقة حتى تصل الكثافة الضوئية (OD)₆₀₀ يصل إلى 0.35-0.40.
- أضف L-arabinose بتركيز 10% (وزن/حجم) مُعقماً بالترشيح، ليصل التركيز النهائي إلى 0.1% (وزن/حجم) لتحفيز تعبير الـ λ بروتينات إعادة الاندماج من نوع Red.
ملاحظة: بالنسبة لمزرعة بحجم 250 مل، أضف 2.5 مل من L-arabinose بتركيز 10% (وزن/حجم) للحصول على تركيز نهائي يبلغ 0.1% (وزن/حجم) تقريباً. - يُحضن المزرع المستحث لمدة 15 دقيقة إضافية عند 30 °C مع الرج بسرعة 180 دورة في الدقيقة.
- انقل دورق إرلنماير الذي يحتوي على المزرعة إلى حمام ثلجي واتركه للحضانة لمدة 40 دقيقة.
- انقل المزرعة المبردة إلى أنابيب طرد مركزي مبردة مسبقاً، واجمع الخلايا عن طريق الطرد المركزي عند 1,800 × جرام لمدة 15 دقيقة عند 4 °Cأزل الطافي بعناية.
- أعد تعليق كتل الخلايا برفق في 30 مل من الجلسرول بتركيز 10% (حجم/حجم) المبرد بالثلج، ثم قم بالطرد المركزي عند 3,000 × ج لمدة 5 دقائق عند 4 °C.
- تخلص من السائل الطافي وكرر عملية الغسل الموصوفة في الخطوة 3.2.2.6 مرتين إضافيتين، ليكون المجموع ثلاث غسلات باستخدام جليسرول بتركيز 10% (حجم/حجم) مبرد بالثلج. بعد الغسلة الأخيرة، تخلص من السائل الطافي بعناية وأعد تعليق الراسب في 200 µL من الجلسرول بتركيز 10% (حجم/حجم) المبرد بالثلج.
- قم بتوزيع الخلايا المختصة كهربائياً *E. coli* خلايا MG1655(pKD46) في 50 µL تجزئة العينات إلى حصص متساوية والاحتفاظ بالخلايا في الثلج حتى عملية التثقيب الكهربائي.
ملاحظة: استخدم الخلايا ذات الكفاءة الكهربائية (electrocompetent cells) المُحضرة حديثاً فوراً لعملية التثقيب الكهربائي (electroporation). أو بدلاً من ذلك، قم بتوزيع الخلايا في أنابيب طرد مركزي دقيقة معقمة، وجمدها عند درجة حرارة -80 °C، ثم تذاب على الثلج قبل الاستخدام اللاحق.
- قم بعمل خطيّة لبنية التكامل المؤتلفة التي تم الحصول عليها من الخطوة 3.1.5.
- قم بهضم البلازميد المؤتلف pKIKOArsBKm الذي يحمل كاسيت جين الامتصاص الحيوي باستخدام إنزيم القطع NotI لتحويل بنية التكامل إلى شكل خطي.
- تحقق من الهضم الكامل للبلازميد المؤتلف عن طريق الرحلان الكهربائي لهلام الأغاروز كما هو موضح في الخطوة 2.2.6.
- قم بتنقية قطعة الحمض النووي DNA المخطية من خليط تفاعل الهضم عن طريق الاستخلاص بالفينول وترسيب الحمض النووي DNA كما هو موضح في الخطوات 2.2.3.6-2.2.3.10.
- قم بإجراء التثقيب الكهربائي لبنية التكامل المخطية في خلايا كفؤة كهربائياً E. coli MG1655(pKD46).
- أضف ما يقرب من 250 نانوغرام من الحمض النووي الريبوزي منقوص الأكسجين (DNA) الخطي المُنقى من الخطوة 3.2.3.3 إلى 50 µL من الخلايا ذات الكفاءة الكهربائية المُحضرة حديثاً *E. coli* خلايا MG1655(pKD46). اخلط المزيج بلطف وانقل خليط الخلايا والحمض النووي (DNA) إلى كيوفيت التثقيب الكهربائي المبرد مسبقاً.
- قم بإجراء التثقيب الكهربائي للخلايا عند 1.8 كيلوفولت، 600 Ωو، و 25 µF باستخدام جهاز التثقيب الكهربائي.
- أضف فوراً 500 µL من وسط SOC إلى كوفت electroporation وإعادة تعليق الخلايا برفق.
- انقل معلق الخلايا المستعادة إلى أنبوب طرد مركزي دقيق معقم، واترك الخلايا لتتعافى لمدة ساعة واحدة عند 37 °C مع الرج بسرعة 180 دورة في الدقيقة.
- نشر 100 µL لمعلق الخلايا المسترجع على أطباق آغار LB المدعمة بالكاناميسين (50 µg/mL) وتحضن لمدة 16-18 ساعة عند 37 °C.
- افحص المستعمرات المؤتلفة للتحقق من الاندماج الكروموسومي.
- اختر مستعمرات فردية مقاومة للكاناميسين، ثم قم بتلقيح كل منها في أنبوب منفصل يحتوي على 10 مل من مرق LB مع كاناميسين بتركيز نهائي قدره 50 µg/mL.
- تُنمّى المزارع لمدة تتراوح بين 16 و18 ساعة عند 37 °C مع الرج بسرعة 180 دورة في الدقيقة.
- انقل 5 مل من كل مزرعة إلى أنبوبة معقمة منفصلة، واعزل الحمض النووي البلازميدي (plasmid DNA) كما هو موضح في الخطوة 2.2.3.
- حلل الحمض النووي (DNA) المعزول عن طريق الرحلان الكهربائي لهلام الأجاروز كما هو موضح في الخطوة 2.2.6.
- تحديد العينات التي لا يمكن فيها الكشف عن الحمض النووي البلازميدي (plasmid DNA) بواسطة الفصل الكهربائي بهلام الأجاروز، والاحتفاظ بهذه العينات لتقييم التكامل الكروموسومي لاحقاً.
- اعزل الحمض النووي الريبوزي منقوص الأكسجين (gDNA) من الـ 5 مل المتبقية من كل مزرعة تم الاحتفاظ بها في الخطوة 3.2.5.3، واستخدم الحمض النووي الريبوزي منقوص الأكسجين المعزول كقالب لتضخيم تفاعل البوليميراز المتسلسل (PCR) لـ cadD, cadA، و ميتوكوندريا الجينات كما هو موضح في الخطوة 3.2.7.
- انقل 5 مل من المزرعة البكتيرية التي نمت لمدة 16-18 ساعة إلى أنبوب طرد مركزي معقم، وقم بترسيب الخلايا عن طريق الطرد المركزي عند 11,000 × ج لمدة 10 دقائق عند 4 °Cتخلص من الطافي.
- أعد تعليق كتلة الخلايا برفق في 5 مل من المحلول الملحي المُنظم بالفوسفات (PBS) المعقم. ثم قم بالطرد المركزي عند 11,000 × جـ لمدة 10 دقائق عند 4 °C، ثم يتم إزالة الطافي تماماً.
- أعد تعليق كتلة الخلايا المغسولة في 100 µL من محلول الليزوزيم (50 ملغ/مل)، ثم تُحضن المعلق عند 37 °C لمدة ساعة واحدة.
- أضف 500 µL إضافة محلول ثيوسيانات الغوانيدين بتركيز 5 مولار إلى الخلايا المعالجة بالليزوزيم. اخلط المزيج بلطف ثم حضنه في درجة حرارة الغرفة لمدة 10 دقائق.
تنبيه: مادة ثيوسيانات الغوانيدين ضارة وقد تطلق غازات سامة عند خلطها بالأحماض أو المبيضات. يجب ارتداء معدات الوقاية الشخصية المناسبة والتعامل مع المحاليل التي تحتوي على الغوانيدين وفقاً لإجراءات السلامة الكيميائية المعتمدة في المؤسسة. - ضع العينة على الثلج لمدة 10 دقائق، ثم أضف 250 µL من خلات الأمونيوم بتركيز 7.5 مولار المبردة بالثلج مع الخلط بلطف. يُحفظ المزيج على الثلج لمدة 10 دقائق إضافية.
- أضف الفينول المتوازن بمحلول TE إلى المستخلص بنسبة 1:1 (حجم/حجم). قم بالرج القوي باستخدام جهاز الـ Vortex، ثم قم بالطرد المركزي بسرعة 10,000. × ج لمدة 15 دقيقة.
تنبيه: يعد الفينول والكلوروفورم مادتين سامتين ومآكلتين. يجب التعامل مع الفينول داخل خزانة استرداد أبخرة كيميائية معتمدة مع ارتداء معدات الوقاية الشخصية المناسبة. - انقل الطبقة المائية العلوية بعناية إلى أنبوب طرد مركزي دقيق معقم وجديد دون تعكير الطبقة البينية.
- أضف 0.1 حجم من محلول خلات الصوديوم وحجمين من الإيثانول المطلق إلى الطور المائي المسترجع. اخلط المزيج برفق عن طريق القلب، ثم حضنه عند درجة حرارة −20 °C لمدة 20 دقيقة.
- قم بطرد العينة مركزياً عند 10,000 × ج لمدة 15 دقيقة. قم بإزالة السائل الطافي بعناية دون تحريك كتلة الحمض النووي (DNA pellet).
- اشطف راسب الحمض النووي (DNA) بـ 100 µL من الإيثانول بنسبة 70% (حجم/حجم).
- تتم عملية الطرد المركزي عند 10,000 × جـ لمدة 10 دقائق، أزل الإيثانول المتبقي، واترك كرة الحمض النووي (DNA pellet) لتجف في الهواء في درجة حرارة الغرفة لمدة 10 دقائق.
- أعد تعليق كتلة الحمض النووي (DNA) المجففة في 20-50 µL من محلول TE المنظم أو الماء الخالي من النوكلياز.
نقطة توقف: يُحفظ الحمض النووي الريبوزي منقوص الأكسجين الجينومي المعزول عند درجة حرارة −20 °C إلى حين الحاجة إليها في التحليل الجزيئي اللاحق.
- تقييم التكامل الكروموسومي عن طريق تفاعل البوليميراز المتسلسل (PCR) الخاص بالجين وتحليل الحمض النووي البلازميدي.
- قم بإعداد عينات منفصلة 25 µL مزيج تفاعلات PCR لتضخيم الـ cadD, cadA، و الميتوكوندريا الجينات.
- لكل تفاعل، أضف البادئات الأمامية والعكسية المقابلة لتصل إلى تركيز نهائي قدره 0.4 µM كل منها، جنباً إلى جنب مع 1× محلول منظم لتفاعل البوليميراز المتسلسل (PCR buffer)، 200 µM من كل dNTP، و1.5 ملي مولار من MgCl2₂، و100 نانوغرام من الحمض النووي الريبوزي منقوص الأكسجين الجينومي المعزول في الخطوة 3.2.6، وإنزيم Taq DNA polymerase بتركيز 0.2 وحدة/µLأضف ماءً خالياً من النيوكلياز حتى يصل الحجم النهائي للتفاعل إلى 25 µL.
- قم بتضخيم الجينات المستهدفة بواسطة تفاعل البوليميراز المتسلسل (PCR) باستخدام برنامج الدورات التالي: مسخ أولي عند 95 °C لمدة 5 دقائق؛ إجراء 35 دورة من المسخ عند 94 °C لمدة 30 ثانية، ثم التلدين لمدة 30 ثانية عند درجة الحرارة الخاصة بالجين والمدرجة في جدول 2، والتحويلة رقم 72 °C لمدة دقيقة واحدة؛ ثم يتم إجراء تمديد نهائي عند 72 °C لمدة 5 دقائق.
- حلل نواتج تفاعل البوليميراز المتسلسل (PCR) باستخدام الرحلان الكهربائي لهلام الأجاروز كما هو موضح في الخطوة 2.2.6، مع استخدام سلم الحمض النووي (DNA ladder) بحجم 1 كيلوبايت كمؤشر للحجم الجزيئي.
- قيّم نواتج تفاعل البوليميراز المتسلسل (PCR) عن طريق مقارنة هجرتها مع سلم الحمض النووي (DNA ladder) مقاس 1 كيلوباز، وحدد الحزم التي تتوافق مع أحجام القطع المضخمة المتوقعة والبالغة 619 زوجاً قاعدياً لـ cadD، 2,564 زوج قاعدي لـ cadA، و154 زوج قاعدي لـ الميتوكوندريا.
ملاحظة: إن غياب الحمض النووي البلازميدي القابل للكشف، مقترناً بتضخيم النطاق المتوقع cadD, cadA، و الميتوكوندريا توفر شظايا الحمض النووي الريبوزي منقوص الأكسجين الجينومي دليلاً يدعم التكامل الكروموسومي لـمجموعة جينات الامتزاز الحيوي.
- قم بإعداد عينات منفصلة 25 µL مزيج تفاعلات PCR لتضخيم الـ cadD, cadA، و الميتوكوندريا الجينات.
- تجهيز λ خلايا مضيفة ذات إعادة تركيب Red.
4. استئصال علامة مقاومة الكاناميسين.
- تحضير خلايا E. coli MG1655 مؤشبة ذات كفاءة كهربائية تحتوي على كاسيت جين الممتز الحيوي (Biosorbent).
- تلقيح مستعمرة مؤشبة من E. coli MG1655 تحمل كاسيت الممتز الحيوي المدمج كروموسومياً، والمؤكد في الخطوة 3.2.7، في 5 mL من مرق LB المضاف إليه كاناميسين (50 µg/mL).
- تحضين المزرعة عند 37 °C مع الرج بسرعة 180 rpm حتى تصل الكثافة الضوئية OD₆₀₀ إلى 0.4–0.6.
- نقل المزرعة إلى الثلج فور وصول OD₆₀₀ إلى 0.4–0.6 وتحضينها على الثلج لمدة 15 min.
- حصاد الخلايا عن طريق الطرد المركزي بسرعة 4,000 × g لمدة 10 min عند 4 °C والتخلص من السائل الطافي.
- غسل كتلة الخلايا مرتين بماء منزوع الأيونات مبرد بالثلج، يليه غسلة واحدة بـجليسرول 10% (v/v) مبرد بالثلج.
- إعادة تعليق كتلة الخلايا النهائية في 50 µL من جليسرول 10% (v/v) مبرد بالثلج.
ملاحظة: يجب الحفاظ على الخلايا وجميع المحاليل مبردة بالثلج طوال إجراء عملية الغسيل للحفاظ على الكفاءة الكهربائية.
- التثقيب الكهربائي للبلازميد المساعد pCP20
- إضافة 50 ng من البلازميد المساعد pCP20 إلى 50 µL من الخلايا ذات الكفاءة الكهربائية. تخلط المكونات بلطف وينقل المزيج إلى كوب تثقيب كهربائي مبرد مسبقاً.
- إجراء التثقيب الكهربائي للخلايا باستخدام الإعدادات التالية: 2.5 kV، و600 Ω، و25 µF.
- إضافة 1 mL من وسط SOC فوراً إلى كوب التثقيب وإعادة تعليق الخلايا بلطف.
- نقل الخلايا المستعادة إلى أنبوب مزرعة معقم وتحضينها عند 30 °C مع الرج بسرعة 180 rpm لمدة 1 h.
- نشر 100 µL من المزرعة المستعادة على أطباق أغار LB المضاف إليها أمبيسيلين (100 µg/mL). تحضن الأطباق لمدة 16–18 h عند 30 °C.
- اختيار مستعمرات مفردة ومعزولة جيداً لتأكيد المؤشبات الإيجابية.
- تأكيد وجود بلازميد pCP20 عن طريق عزل البلازميد كما هو موضح في الخطوة 2.2.3، يليه الفصل الكهربائي بهلام الأغاروز كما هو موضح في الخطوة 2.2.6.
ملاحظة: يتم الحفاظ على الخلايا المحولة عند 30 °C للحفاظ على بلازميد pCP20 الحساس للحرارة.
- استئصال كاسيت مقاومة الكاناميسين.
- تلقيح مستعمرة مؤكدة مقاومة للأمبيسيلين من الخطوة 4.2 في مرق LB خالٍ من المضادات الحيوية وتحضينها لمدة 16–18 h عند 42 °C مع الرج بسرعة 180 rpm لتحفيز تعبير ريكومبيناز FLP والتخلص من بلازميد pCP20 الحساس للحرارة.
- تخطيط المزرعة النامية لمدة 16–18 h بشكل منفصل على أطباق أغار LB لا تحتوي على مضادات حيوية، وأخرى تحتوي على كاناميسين (50 µg/mL)، وأخرى تحتوي على أمبيسيلين (100 µg/mL). يحضن كل طبق لمدة 16–18 h عند 37 °C.
- تحديد المستعمرات التي تنمو فقط على أغار LB الخالي من المضادات الحيوية وتفشل في النمو على الأطباق المحتوية على الكاناميسين أو الأمبيسيلين. يتم اختيار هذه المستعمرات كمؤشبات مفترضة خالية من العلامات.
- تنقية المؤشبات الخالية من العلامات عن طريق إعادة تخطيط مستعمرة مفردة على أطباق أغار LB طازجة وخالية من المضادات الحيوية.
نقطة توقف: تخزن سلالات المؤشبات المنقاة الخالية من العلامات كمخزونات جليسرول عند −80 °C حتى وقت الحاجة إليها للتأكيد الجزيئي اللاحق أو التوصيف الوظيفي.
5. تحليل تعبير GFP للممتز الحيوي المكون من خلية كاملة باستخدام المجهر الفلوري.
- تحضير المزارع البكتيرية للتعرض للمعادن الثقيلة.
- تلقيح 5 µL من مزرعة نمت لمدة 16–18 ساعة من سلالة E. coli MG1655 المؤتلفة والخالية من العلامات، والتي تحمل بنية الامتصاص الحيوي المدمجة كروموسومياً من الخطوة 4.3.4، في مرق LB يحتوي على Cd2⁺ أو Zn2⁺ أو Pb2⁺ بتركيزات نهائية تبلغ 1، 5، 10، 50، 100، 500، أو 1000 ppm.
- لتحضير محاليل المعادن الثقيلة، يتم أولاً تحضير محاليل مخزنة معقمة بتركيز 2,000 ppm من Cd2⁺ وZn2⁺ وPb2⁺ عن طريق إذابة كلوريد الكادميوم (CdCl₂) وكلوريد الزنك (ZnCl₂) ونترات الرصاص [Pb (NO₃)₂] من الدرجة التحليلية، على التوالي، في مرق LB معقم.
- تعقيم كل محلول مخزن عن طريق الترشيح باستخدام مرشح غشائي بمسامية 0.22 µm. تُحفظ المحاليل المخزنة المعقمة عند درجة حرارة 4 °C حتى وقت الاستخدام.
- تحضير محاليل عمل طازجة عن طريق تخفيف كل محلول مخزن باستخدام مرق LB معقم للوصول إلى تركيزات نهائية لأيونات المعادن تبلغ 1، 5، 10، 50، 100، 500، و1,000 ppm.
ملاحظة: يتم تحضير كل محلول معدني بشكل منفصل لتجنب الترسيب أو التفاعلات بين أيونات المعادن المختلفة.
- تحضير أربعة ظروف ضابطة: سلالة E. coli MG1655 البرية المزروعة تحت نفس ظروف السلالة المؤتلفة، وسلالة E. coli MG1655 المؤتلفة والخالية من العلامات والتي تحمل كاسيت متعدد الجينات مدمج كروموسومياً والمزروعة في مرق LB بدون إضافة معادن ثقيلة كضابط مؤتلف بدون معادن، وسلالة E. coli JM109 المعبرة عن GFP والتي تحتوي على بلازميد pQBIT-GFP-T7 كضابط بيولوجي إيجابي لـ GFP، ومرق LB غير ملقح يحتوي على تركيزات المعادن الثقيلة المقابلة كضابط غير حيوي.
- تحضين جميع المزارع لمدة 16–18 ساعة عند 37 °C مع الرج بسرعة 180 rpm.
- تلقيح 5 µL من مزرعة نمت لمدة 16–18 ساعة من سلالة E. coli MG1655 المؤتلفة والخالية من العلامات، والتي تحمل بنية الامتصاص الحيوي المدمجة كروموسومياً من الخطوة 4.3.4، في مرق LB يحتوي على Cd2⁺ أو Zn2⁺ أو Pb2⁺ بتركيزات نهائية تبلغ 1، 5، 10، 50، 100، 500، أو 1000 ppm.
- تحضير شرائح المجهر.
- نقل 1 µL من كل مزرعة بكتيرية باستخدام الماصة إلى شريحة مجهر زجاجية نظيفة ومنفصلة. تُفرد المزرعة لتكوين طبقة خلوية رقيقة ومنتظمة، وتُترك المسحة لتجف تماماً في الهواء.
- التقاط صور الفلورية.
- فحص العينات المحضرة باستخدام مجهر فلوري بتكبير 600× مجهز بمجموعة مرشحات FITC (طول موجة الإثارة 460–490 nm).
- التقاط صور الفلورية وصور المجال المضيء المقابلة باستخدام إعدادات مجهرية متطابقة لجميع العينات المؤتلفة والضابطة.
ملاحظة: يجب الحفاظ على زمن تعريض، وكسب (gain)، وكثافة إضاءة، وتكبير متطابقة لجميع العينات لتمكين المقارنة المباشرة لشدة فلورية GFP بين المعاملات.
تنبيه: تجنب تعريض العينات لفترات طويلة لضوء الإثارة لتقليل التبييض الضوئي لبروتين GFP.
النتائج
In-silico تصميم بنية الممتز الحيوي متعدد الجينات
بلغ الطول الإجمالي لكاسيت الامتصاص الحيوي متعدد الجينات المصمم 4,741 bp، وتكون من المحفز التكويني Ppdh يليه جينات مقاومة المعادن الثقيلة cadD وcadA وmt، مرتبة كأوبرون متعدد السيزترون. وقد تم دمج مواقع ربط الريبوسوم (RBS) فردية في المنبع من كل تسلسل تشفير لتسهيل عملية الترجمة الفعالة، بينما تم إدراج جين مراسل gfp في المصب من جينات الامتصاص الحيوي لتمكين مراقبة تعبير البنية (الشكل 1).
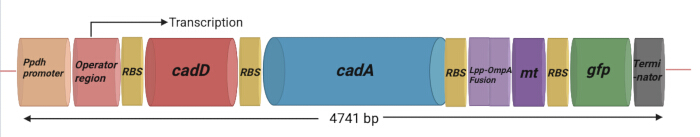
الشكل 1: تصميم وتنظيم البنية متعددة الجينات. تم تصميم الكاسيت متعدد الجينات بطول 4,741-bp باستخدام محفز Ppdh (pyruvate dehydrogenase) التأسيسي، يليه منطقة مشغل لتوجيه التعبير عن الجينات المرتبطة بمقاومة المعادن الثقيلة وعزلها. تحتوي البنية على جينات مقاومة المعادن الثقيلة cadD و cadA، وجين الميتالوثيونين (mt)، ومكون عرض سطحي وهو البروتين A للغشاء الخارجي الليبوبروتيني (Lpp-OmpA) المدمج مع mt لغرض التموضع على سطح الخلية، وجين المراسل gfp. تم إدراج مواقع ارتباط ريبوسومية (RBS; 5′-AGGAGG-3′) فردية في المنطقة العلوية من تسلسلات الترميز الخاصة بها لدعم الترجمة داخل الكاسيت متعدد الجينات. ويوجد تسلسل إنهاء في المنطقة السفلية من gfp. تم تصميم الكاسيت الكامل كبنية بطول 4,741-bp لغرض الاستنساخ والدمج الكروموسومي اللاحق في E. coli. الاختصارات: Ppdh = محفز pyruvate dehydrogenase؛ RBS = موقع ارتباط الريبوسوم؛ Lpp-OmpA = البروتين A للغشاء الخارجي الليبوبروتيني؛ mt = ميتالوثيونين؛ gfp = جين البروتين الفلوري الأخضر؛ bp = أزواج قاعدية؛ E. coli = Escherichia coli. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
لتسهيل عزل المعادن خارج الخلية، تم دمج جين mt مع مرساة الغشاء الخارجي Lpp-OmpA لتمكين التمركز السطحي لبروتين الميتالوثيونين. وبناءً على تصميم البنية الجينية، تم توجيه CadD وCadA إلى الغشاء الداخلي كبروتينات ناقلة للمعادن عبر الغشاء، بينما تم توجيه البروتين المدمج Lpp-OmpA-Mt إلى الغشاء الخارجي. وقد صُمم البروتين المراسل GFP للتعبير السيتوبلازمي لتسهيل مراقبة التعبير الجيني للممتز الحيوي (الشكل 2).
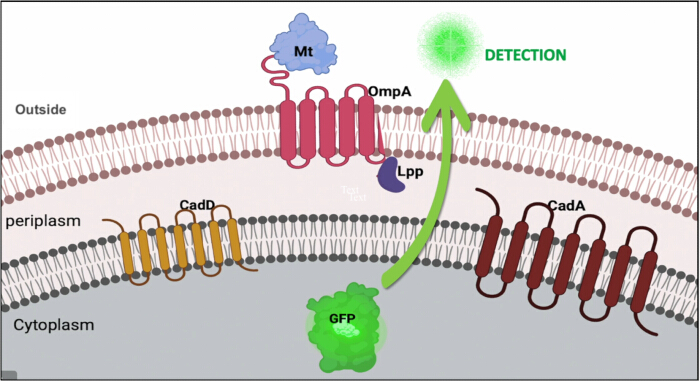
الشكل 2: التموضع المتوقع للبروتينات المعبر عنها من بنية الماص الحيوي متعدد الجينات. تم تصميم CadD و CadA للتموضع داخل الغشاء الداخلي، بينما استهدف اندماج البروتين السكري الغشائي الخارجي A (Lpp-OmpA)-metallothionein الغشاء الخارجي، وأُدرج البروتين الفلوري الأخضر كبروتين مراسل سيتوبلازمي. الاختصارات: Lpp-OmpA = البروتين السكري–البروتين الغشائي الخارجي A؛ Mt = metallothionein؛ GFP = البروتين الفلوري الأخضر. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تدرج مصادر تسلسلات النيوكليوتيدات لكل عنصر وراثي تم دمجه في بنية الممتص الحيوي في الجدول 1.
| العنصر الجيني في بنية الممتز الحيوي | الموقع في البنية (bp) | المصدر/المرجع |
| Ppdh | 7-74 | Gao et al. 2002.14 |
| المشغل (Operator) | 75-92 | منطقة المشغل لـ cad D من سلالة Staphylococcus epidermidis TWSL_22 : رقم الوصول في NCBI Gene Bank هو: MK900473.1 |
| cadD | 97-716 | رقم الوصول في NCBI Gene Bank هو: MK900473.1 |
| cadA | 770-3334 | رقم الوصول في NCBI Gene Bank هو: MK327282.1 |
| Lpp-OmpA | 3385-3754 | Stathopoulo et al. 1995. 15 |
| mt | 3755-3909 | رقم الوصول في NCBI Gene Bank هو: MK900456.1 |
| gfp | 3960-4679 | ناقل TPMV_P-EGFP_H-His6، رقم الوصول في NCBI Gene Bank هو: MF379627.1 |
| المنهي (Terminator) | 4684-4741 | منطقة المنهي لأوبرون cadAC من سلالة Bacillus megaterium TWSL-4 : رقم الوصول في NCBI Gene Bank هو: MK327282.1 |
الجدول 1: مصادر تتابعات النيوكليوتيدات للعناصر الجينية في بنية الممتز الحيوي. يلخص الجدول العناصر الجينية المدمجة في البنية متعددة الجينات التي يبلغ طولها 4,741-bp، بما في ذلك مصادر تتابعاتها، وأرقام الوصول أو المراجع، ومواقع النيوكليوتيدات داخل البنية الجينية. الاختصارات: Ppdh = محفز بيروفات ديهيدروجيناز؛ Lpp-OmpA = البروتين الدهني-بروتين الغشاء الخارجي A؛ mt = ميتالوثيونين؛ gfp = جين البروتين الفلوري الأخضر؛ NCBI = المركز الوطني لمعلومات التقانة الحيوية؛ bp = أزواج قاعدية.
تحويل والتحقق من البناء المُصنّع في E. coli BL21(DE3)
تم التحقق بنجاح من بلازميد pET-21a المؤتلف الذي يحمل كاسيت جين الامتصاص الحيوي عن طريق الهضم بإنزيمات التقييد (الشكل 3A). وقد نتج عن الهضم المزدوج باستخدام BamHI وXhoI قطعتان من DNA تتوافقان مع الهيكل الأساسي لناقل pET-21a (5,331 bp) وكاسيت جين الامتصاص الحيوي (4,741 bp)، وهو ما يتفق مع الحجم المتوقع للبناء الجيني. وعلى الرغم من أن قطعتي DNA أظهرتا انفصالاً محدوداً على هلام الأغاروز بتركيز 1% بسبب تقارب أحجامهما، إلا أنه كان من الممكن تمييز كلتا القطعتين بوضوح، مما يؤكد سلامة البناء المؤتلف.
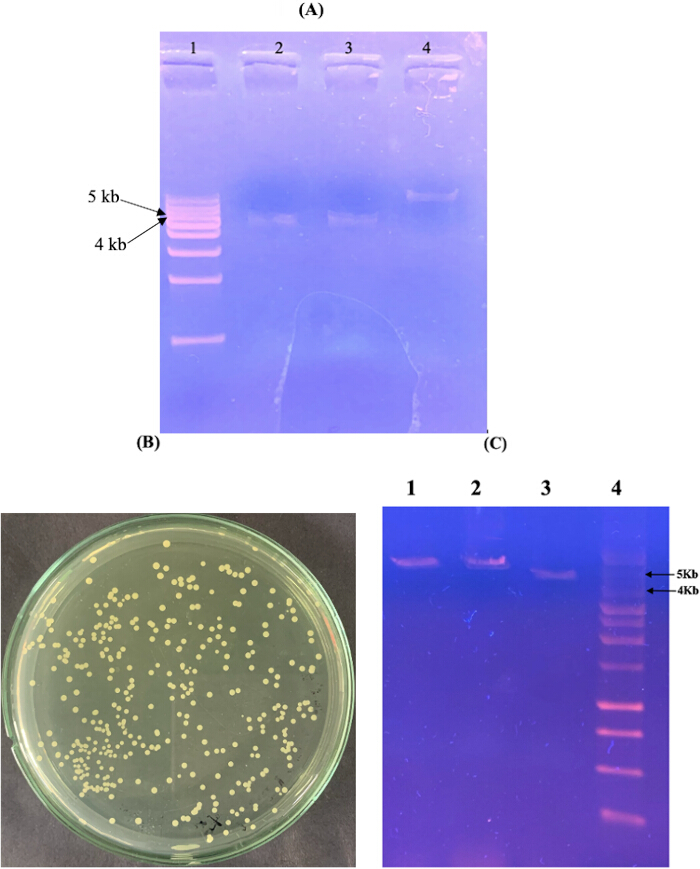
الشكل 3: بناء والتحقق من البلازميد الممتز الحيوي المؤتلف. (A) تحليل إنزيمات القطع للبناء الممتز الحيوي المُصنّع والمستنسخ في ناقل التعبير pET-21a. المسار 1، سلم DNA بحجم 1 kb؛ المساران 2-3، البلازميد المؤتلف المهضوم مزدوجاً والذي يظهر الهيكل الأساسي لناقل pET-21a (بواقع 5,331 bp) وكاسيت جين الممتز الحيوي (بواقع 4,741 bp)؛ المسار 4، البلازميد المؤتلف غير المهضوم. (B) محولات E. coli BL21(DE3) المقاومة للأمبيسيلين والتي تحمل البلازميد الممتز الحيوي المؤتلف. (C) تحليل إنزيمات القطع للبلازميدات المعزولة من محولات ممثلة. المسار 1، بلازميد مهضوم بإنزيم BamHI؛ المسار 2، بلازميد مهضوم بإنزيم XhoI؛ المسار 3، بلازميد مهضوم مزدوجاً بإنزيمي BamHI/XhoI؛ المسار 4، سلم DNA بحجم 1 kb. الاختصارات: DNA = الحمض النووي الريبوزي منقوص الأكسجين؛ bp = أزواج قاعدية؛ kb = كيلو قاعدة؛ E. coli = Escherichia coli. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
بعد عملية تحويل البلازميد المؤتلف إلى سلالة E. coli BL21(DE3)، تم استعادة المستعمرات المقاومة للأمبيسيلين بنجاح (الشكل 3B). ومن ثم، تم تحليل حمض DNA البلازميدي المعزول من محولات ممثلة عن طريق الهضم بإنزيمات القطع. وقد أدى الهضم باستخدام BamHI وXhoI، بالإضافة إلى الهضم المزدوج المشترك، إلى إنتاج أنماط القطع المتوقعة، مما أكد النجاح في تكثير بلازميد الممتز الحيوي المؤتلف في سلالة E. coli BL21(DE3) (الشكل 3C).
تقييم الدمج الكروموسومي لكاسيت جينات الامتزاز الحيوي في E. coli MG1655
تم استنساخ كاسيت جين الامتصاص الحيوي بنجاح في ناقل التكامل الكروموسومي pKIKOArsBKm. تم اختيار المستنسخات المؤتلفة في البداية على أجار LB المضاف إليه كانامايسين (50 µg/mL) (الشكل 4A). وأكد تحليل إنزيمات التقييد نجاح استنساخ كاسيت الامتصاص الحيوي في ناقل التكامل (الشكل 4B). أدى تحويل البلازميد المؤتلف إلى شكل خطي باستخدام NotI إلى إنتاج قطعة DNA المتوقعة بحجم 8.9 kb تقريباً، بينما أدى الهضم المزدوج باستخدام BamHI و SacI إلى تحرير كاسيت الامتصاص الحيوي بحجم 4.7 kb من الهيكل الأساسي للناقل بحجم 4.2 kb، مما أكد الإدراج الصحيح للبناء في pKIKOArsBKm. وأظهر البلازميد غير المهضوم التشكلات المتوقعة من النوع المفتوح (nicked) والملتف فائقاً (supercoiled).
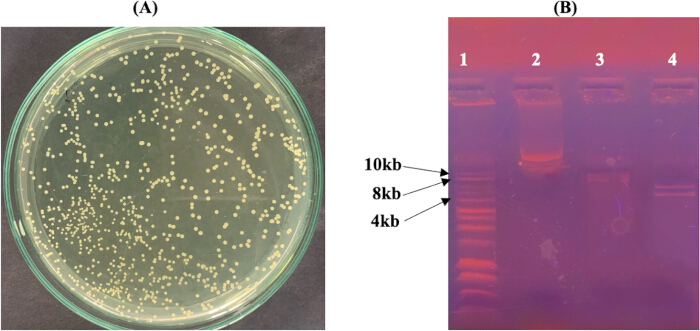
الشكل 4: بناء ناقل التكامل الكروموسومي المؤتلف الذي يحمل كاسيت جين الامتصاص الحيوي. (A) مستعمرات E. coli Pir1 المقاومة للكاناميسين والتي تحمل بلازميد pKIKOArsBKm المؤتلف. (B) تحليل إنزيمات القطع للبلازميد المؤتلف pKIKOArsBKm. المسار 1، سلم DNA بحجم 1 kb؛ المسار 2، بلازميد مؤتلف غير مهضوم؛ المسار 3، بلازميد خطي مهضوم بواسطة NotI (~8.9 kb)؛ المسار 4، بلازميد مهضوم مزدوج بواسطة BamHI/SacI يظهر الهيكل الأساسي للناقل بحجم 4.2 kb وكاسيت الامتصاص الحيوي بحجم 4.7 kb. الاختصارات: DNA = الحمض النووي الريبوزي منقوص الأكسجين؛ kb = كيلو قاعدة؛ E. coli = Escherichia coli. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تم إدخال بنية pKIKOArsBKm المؤشبة والمخطية لاحقاً في خلايا E. coli MG1655(pKD46) ذات الكفاءة الكهربائية لتسهيل التكامل الكروموسومي بوساطة λ Red. وبعد الاختيار على وسط يحتوي على الكاناميسين، تم عزل الحمض النووي الجينومي والحمض النووي البلازميدي من مستعمرات مؤشبة ممثلة للتحقق من نجاح عملية التكامل.
كما هو موضح في الشكل 5، تم عزل DNA الجينومي من مستعمرات معاد تركيبها ممثلة (الممر 1)، بينما لم يتم رصد أي DNA بلازميدي قابل للكشف بعد عملية عزل البلازميد (الممر 2). أدى تضخيم PCR باستخدام البادئات النوعية للجينات الموصوفة في الجدول 2 إلى إنتاج نواتج تضخيم بالأحجام المتوقعة لكل من cadD (619 bp)، وcadA (2,564 bp)، وmt (154 bp) من تحضير DNA الجينومي (الممرات 4-6). ومجتمعةً، قدمت حالة عدم وجود DNA بلازميدي قابل للكشف والكشف عن الجينات الثلاثة المستهدفة في تحضير DNA الجينومي دليلاً يتوافق مع الاندماج الكروموسومي لكاسيت الامتصاص الحيوي متعدد الجينات في سلالة E. coli MG1655.
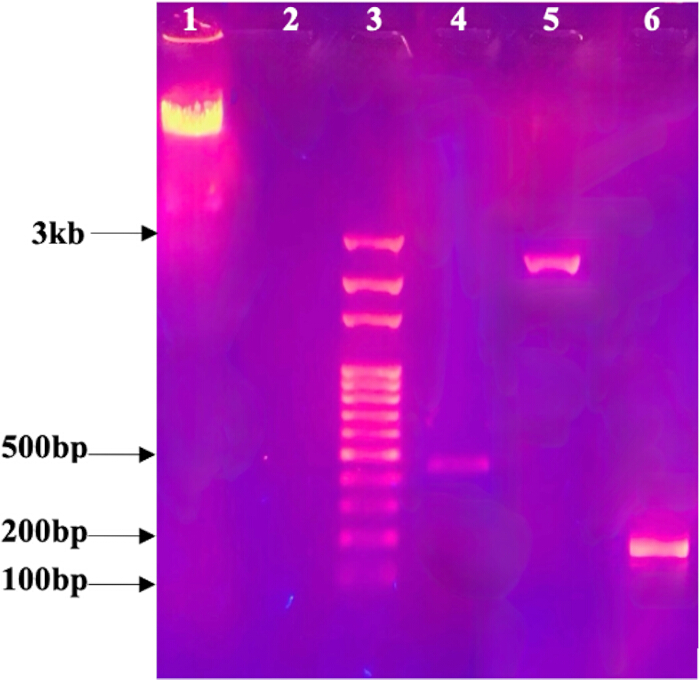
الشكل 5: التقييم الجزيئي لسلالة E. coli المعاد تركيبها والتي تحمل كاسيت جين الامتصاص الحيوي. المسار 1، DNA جينومي تم عزله من سلالة E. coli MG1655 المعاد تركيبها؛ المسار 2، عزل البلازميد من المستعمرة المعاد تركيبها المقابلة، والذي يظهر غياب DNA البلازميد القابل للكشف؛ المسار 3، سلم DNA بحجم 100 bp؛ المسار 4، تضخيم PCR لجين cadD (619 bp)؛ المسار 5، تضخيم PCR لجين cadA (2,564 bp)؛ المسار 6، تضخيم PCR لجين mt (154 bp). الاختصارات: DNA = الحمض النووي الريبوزي منقوص الأكسجين؛ PCR = تفاعل البوليميراز المتسلسل؛ bp = أزواج قاعدية؛ mt = ميتالوثيونين؛ E. coli = Escherichia coli. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| تسلسل الحمض النووي الريبوزي منقوص الأكسجين المستهدف | اسم البادئ | تسلسل قليلة النوكليوتيد (5'←3') | *Tأن (℃) | الحجم المتوقع لناتج تفاعل البوليميراز المتسلسل (bp) |
| cadD | SD-EF | GAATTCATGATTCA GACTATTGTAACTG | 50 | 619 |
| SE-XHR | CTCGAGAAATATAA ATCCTAAAATTGTTTG | |||
| cadA | PD-BF | GGATCCGACACAAT GAAACACGAAGA | 56 | 2564 |
| PF-XHR | CCGCTCGAGCGGCAT GTAATTTTTCATTTTGA GTAAGCGAAG | |||
| ميتوكوندريا | SEmtF | GGAATTCATGGAAAAAT GTGCGAGACCGAAC | 48 | 154 |
| SEmtR | CCGCTCGAGTGCAGTT GCACAGCTACAATC |
الجدول 2: تفاصيل البادئات لتضخيم cadD, cadA, و mt. يدرج الجدول تسلسلات البادئات الأمامية والعكسية المستخدمة في تضخيم PCR لكل من cadD و cadA و mt، إلى جانب درجات حرارة الارتباط المقابلة وأحجام نواتج التضخيم المتوقعة. *Tan- درجة حرارة الارتباط لكل زوج من البادئات المستخدمة في PCR.
تقييم استئصال علامة مقاومة الكاناميسين من سلالة E. coli MG1655 المعاد تركيبها
بعد التحول باستخدام البلازميد المساعد pCP20، تم استعادة المستعمرات المقاومة للأمبيسيلين على أغار LB المضاف إليه الأمبيسيلين (100 µg/mL). وتم الكشف عن الحمض النووي البلازميدي المقابل لـ pCP20 بعد عزل البلازميد من المحولات الممثلة (الشكل 6).
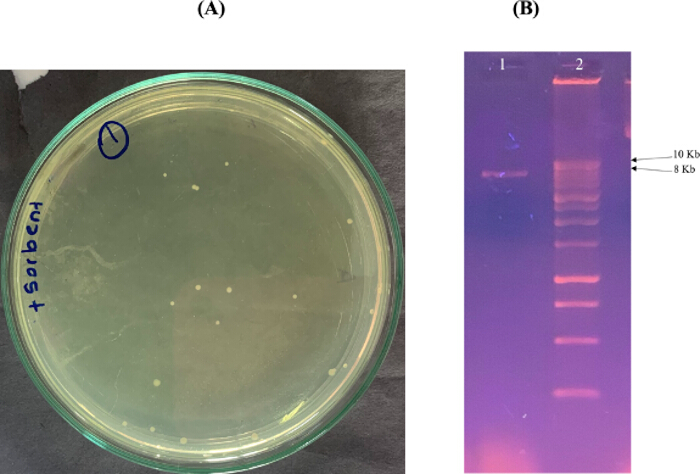
الشكل 6: تأكيد تحول pCP20 في بكتيريا E. coli MG1655 المؤشابة التي تحمل كاسيت الامتصاص الحيوي المدمج كروموسومياً. (A) المحولات المقاومة للأمبيسيلين بعد إدخال بلازميد المساعدة pCP20. (B) الترحيل الكهربائي لهلام الأغاروز لتأكيد وجود بلازميد pCP20. المسار 1، بلازميد pCP20 المعزول (~9.3 kb)؛ المسار 2، سلم DNA بتركيز 10 kb. الاختصارات: DNA = الحمض النووي الريبوزي منقوص الأكسجين؛ kb = كيلوباز؛ E. coli = Escherichia coli. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
بعد عملية استئصال العلامة بوساطة إنزيم FLP recombinase والمعالجة الحرارية للتخلص من pCP20، تم تقييم المستعمرات المؤشبة عن طريق اختبار الحساسية للمضادات الحيوية. وكما هو موضح في الشكل 7، نمت المستعمرات المختبرة على أغار LB الخالي من المضادات الحيوية، ولكنها لم تنمُ على أغار LB المضاف إليه إما kanamycin (50 µg/mL) أو ampicillin (100 µg/mL). وقد كان نمط الحساسية للمضادات الحيوية هذا متوافقاً مع فقدان مقاومة kanamycin وفقدان مقاومة ampicillin عقب إجراء استئصال العلامة والتخلص من البلازميد.
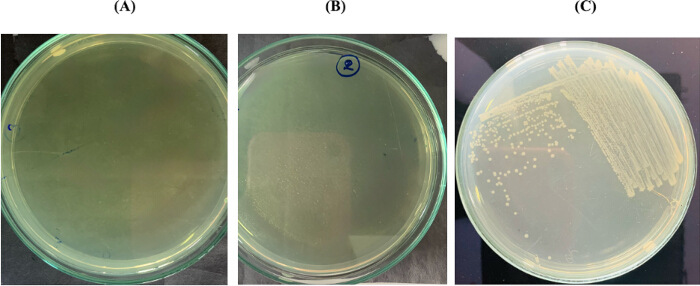
الشكل 7: تأكيد استئصال علامة مقاومة الكاناميسين بوساطة إنزيم flippase والتخلص من البلازميد المساعد pCP20. (A) عدم وجود نمو بكتيري على آغار Luria-Bertani المدعم بالكاناميسين (50 µg/mL). (B) عدم وجود نمو بكتيري على آغار LB المدعم بالأمبيسيلين (100 µg/mL). (C) نمو بكتيري طبيعي على آغار LB الخالي من المضادات الحيوية، مما يؤكد حيوية الخلايا بعد استئصال العلامة. الاختصارات: LB = Luria-Bertani؛ E. coli = Escherichia coli. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تحليل المجهر الفلوري لبكتيريا E. coli MG1655 المؤتلفة التي تحمل بنية الامتصاص الحيوي
تم تقييم بكتيريا E. coli MG1655 المؤتلفة، التي تم إنتاجها عبر إجراء التكامل الكروموسومي، للكشف عن الفلورة الخضراء بعد التعرض لـ Cd2⁺ و Zn2⁺ و Pb2⁺ بتركيزات تتراوح من 1 إلى 1,000 ppm. لم يتم ملاحظة أي فلورة خضراء يمكن الكشف عنها في الخلايا المؤتلفة عند أي من تركيزات المعادن المختبرة. كما لم يتم الكشف عن أي إشارة فلورة في جميع عينات الضبط الأربع.
المناقشة
يصف البروتوكول المعروض هنا سير عمل لبناء سلالة E. coli مؤشبة، خالية من العلامات، ومتعددة الجينات ومدمجة في الكروموسوم، تحتوي على جينات مرتبطة بمقاومة المعادن الثقيلة وعزلها. تجمع هذه الطريقة بين تجميع كاسيت متعدد الجينات، والاستنساخ في ناقل الدمج pKIKOArsBKm، والدمج الكروموسومي بوساطة λ Red، واستئصال العلامة القابلة للاختيار بوساطة FLP-FRT، والتقييم الجزيئي للمستعمرات المؤشبة، والمجهر الفلوري. تم تصميم هذا النهج لتجنب الحفاظ على البناء النهائي في بلازميد متعدد النسخ، ولتوليد سلالة مؤشبة بدون علامة مقاومة الكاناميسين.
هناك عدة خطوات حاسمة للتنفيذ الناجح لهذا البروتوكول. خلال عملية التكامل بوساطة λ Red، يعد الحفاظ على البلازميد pKD46 الحساس للحرارة عند 30 °C قبل إعادة الاتحاد وتحفيز بروتينات إعادة الاتحاد λ Red باستخدام L-arabinose أمراً مهماً لضمان كفاءة هندسة إعادة الاتحاد16,17. كما يتطلب تحضير خلايا E. coli MG1655(pKD46) ذات الكفاءة الكهربائية الحفاظ على الخلايا ومحاليل الغسيل في درجة حرارة منخفضة وتقليل الأملاح المتبقية قبل عملية التثقيب الكهربائي. يجب أن يكون تركيب pKIKOArsBKm المؤتلف خطياً بالكامل ومنقياً قبل التثقيب الكهربائي، حيث يعمل الحمض النووي الخطي كركيزة لإعادة الاتحاد بوساطة λ Red. وقد أُفيد سابقاً أن نظام التكامل pKIKO يستوعب إدراجات كبيرة نسبياً من الحمض النووي ويدعم التكامل الكروموسومي الفعال18,19. وبعد عملية الاختيار، يجب تقييم المستعمرات المرشحة باستخدام تحضيرات الحمض النووي البلازميدي والجينومي معاً. وفي الدراسة الحالية، قدم عدم وجود حمض نووي بلازميدي يمكن الكشف عنه، إلى جانب تضخيم cadD، cadA، و mt من تحضير الحمض النووي الجينومي، دليلاً يتوافق مع التكامل الكروموسومي. ومع ذلك، فإن هذه الاختبارات وحدها لا تحدد بشكل قاطع حدث التكامل الجينومي الدقيق. ويمكن أن يوفر تفاعل البوليميراز المتسلسل (PCR) الخاص بنقاط الاتصال، أو التسلسل عبر حدود التكامل، أو تسلسل الجينوم الكامل تأكيداً أكثر مباشرة لموقع التكامل في التطبيقات المستقبلية لهذا البروتوكول.
يعد استئصال العلامة مكوناً حاسماً آخر في هذه الطريقة. يوفر نظام إعادة الاندماج FLP-FRT وسيلة لإزالة علامات المقاومة للمضادات الحيوية القابلة للاختيار بعد الهندسة الجينومية16,20. بعد إدخال البلازميد المساعد pCP20 الحساس للحرارة، يتم الحفاظ على المستنسخات عند 30 °C، ثم تُحضن عند 42 °C لتحفيز استئصال العلامة بواسطة FLP وفقدان pCP20. بعد ذلك، يجب تقييم المستعمرات على أوساط خالية من المضادات الحيوية، وأوساط تحتوي على kanamycin، وأوساط تحتوي على ampicillin. إن النمو على الوسط الخالي من المضادات الحيوية، مصحوباً بغياب النمو على الأوساط التي تحتوي على kanamycin وampicillin، يوفر نهج فحص عملياً لتحديد المستعمرات المرشحة الخالية من العلامات بعد إجراء عملية الاستئصال والتنقية. إذا ظلت هناك مستعمرات مقاومة للمضادات الحيوية، فقد يتطلب الأمر مزيداً من تنقية المستعمرات المفردة والتنقية المعتمدة على درجة الحرارة قبل إجراء المزيد من التوصيف. تختلف استراتيجية التكامل الكروموسومي المستخدمة هنا عن طرق التعبير التقليدية القائمة على البلازميدات.
يمكن لأنظمة البلازميد أن توفر أعداداً أكبر من نسخ الجينات، وبالتالي قد تكون مفيدة عندما يكون التعبير القوي عن البروتين المأشوب مطلوباً. ومع ذلك، يمكن أن تتأثر الأنظمة القائمة على البلازميد بانفصال البلازميد، وتغير عدد النسخ، والعبء الأيضي، والاعتماد على الضغط الانتقائي للحفاظ على البلازميد. يزيل الدمج الكروموسومي الحاجة إلى الحفاظ على كاسيت الامتصاص الحيوي النهائي كبلازميد خارج الكروموسوم، وقد تم اختياره في هذا البروتوكول لتوفير تكوين جيني أكثر استدامة. وقد وصفت دراسات سابقة الدمج الكروموسومي كمنهج لتحسين الحفاظ الجيني أثناء انقسام الخلايا21,22. ومع ذلك، لم يتم تقييم الاستقرار الجيني طويل الأمد للسلالة المأشوبة الناتجة في الدراسة الحالية بشكل مباشر. ولذلك، لا ينبغي اعتبار الاستقرار الجيني المحسن نتيجة مثبتة تجريبياً لهذا البروتوكول. يعد التصميم متعدد الجينات ميزة أخرى لهذه الطريقة؛ فبدلاً من إدخال جين واحد مرتبط بالمعادن، يجمع الكاسيت بين cadA، و cadD، والميتالوثيونين (mt) مع تصميم عرض سطحي Lpp-OmpA ومراسل gfp . ركزت استراتيجيات الامتصاص الحيوي البكتيري المأشوب السابقة عادةً على بروتينات ربط المعادن الفردية أو محددات المقاومة11,13,23,24. يسمح التكوين التركيبي المستخدم هنا بدمج مكونات جينية متعددة في سير عمل واحد للدمج الكروموسومي. وبناءً على ذلك، يمكن تكييف البروتوكول لبناءات متعددة الجينات أخرى عن طريق تعديل الجينات، أو المحفز، أو المراسل، أو مكونات العرض السطحي وفقاً للتطبيق المنشود. ومع ذلك، فإن زيادة حجم الكاسيت وعدد الجينات المعبر عنها قد يؤثر على كفاءة إعادة الاندماج، والنسخ، والترجمة، والعبء الأيضي الخلوي، وهو أمر يجب مراعاته عند تكييف الطريقة.
يتمثل أحد القصور الهام في الدراسة الحالية في أنه لم يتم إثبات التعبير الوظيفي لـ cassette المهندسة تحت الظروف التجريبية التي تم اختبارها. حيث لم يُلاحظ أي تألق GFP يمكن الكشف عنه بعد تعريض الخلايا المؤشبة لـ Cd2⁺ أو Zn2⁺ أو Pb2⁺. وبناءً على ذلك، فإن البيانات الحالية لا تثبت التعبير الوظيفي لـ cassette متعدد الجينات الكامل أو توضح الامتزاز الحيوي للمعادن الثقيلة بواسطة السلالة المؤشبة. وبوجه عام، يؤدي التكامل الكروموسومي إلى أعداد نسخ جينية أقل من أنظمة البلازميدات متعددة النسخ، كما يمكن أن يتأثر التعبير المؤشب بموقع الإدخال الجينومي ونشاط المحفز22,25. بالإضافة إلى ذلك، قد تؤثر الاستجابات الخلوية لإجهاد المعادن الثقيلة على التعبير الجيني غير المتجانس26,27. تمثل هذه العوامل اعتبارات محتملة وليست تفسيرات مثبتة تجريبياً لغياب التألق القابل للكشف في الدراسة الحالية. عند تطبيق هذا البروتوكول، يجب أن يؤدي غياب التألق القابل للكشف إلى تقييم ظروف المزرعة، وظروف التعرض للمعادن، ونشاط المحفز، والتعبير عن المراسل. ومن شأن القياسات المستقلة للنسخ وإنتاج البروتين أن تساعد في التمييز بين التعبير غير الكافي والقصور في الكشف عن التألق. كما قد يفرض التعبير المتزامن لبروتينات مؤشبة متعددة متطلبات أيضية إضافية على المضيف، خاصة في ظل ظروف المزرعة المجهدة28.
تتطلب هذه الاحتمالات تقييماً تجريبياً مباشراً قبل التمكن من تحديد سبب غياب فلورة GFP القابلة للكشف. كما يواجه البروتوكول قيوداً في توصيف السلالة المأشوبة النهائية؛ حيث يوفر تفاعل البوليميراز المتسلسل (PCR) الخاص بالجين وغياب الحمض النووي البلازميدي القابل للكشف أدلة تتفق مع التكامل الكروموسومي، ولكنها لا تحدد التسلسل الدقيق لموقع التكامل أو الاستقرار الجيني على المدى الطويل. وتوفر الحساسية للمضادات الحيوية فحصاً عملياً بعد استئصال العلامة، ولكن يمكن تعزيز ذلك بالتحليل الجزيئي للمنطقة التي تحتوي على FRT عندما تكون هناك حاجة إلى تأكيد أكثر مباشرة. بالإضافة إلى ذلك، يوفر المجهر الفلوري تقييماً نوعياً لفلورة GFP القابلة للكشف، ولكنه لا يغني عن القياسات الكمية للنسخ أو وفرة البروتين. وبناءً على ذلك، فإن تفاعل البوليميراز المتسلسل الكمي مع النسخ العكسي (Quantitative reverse-transcription PCR)، وتحليل البروتين، وقياسات الفلورة الكمية، والتأكيد القائم على التسلسل، يمكن أن تعزز من توصيف السلالات التي يتم إنتاجها باستخدام هذا البروتوكول.
هناك حاجة إلى مزيد من التحسين والتوصيف الوظيفي قبل تقييم السلالة المهندسة كممتز حيوي وظيفي للمعادن الثقيلة. وتعد القياسات المباشرة لامتصاص المعادن أو إزالتها ضرورية لتحديد أداء الامتزاز الحيوي. كما يجب التحقق تجريبياً من تعبير البروتين وتوضعه، لا سيما بالنسبة لاندماج Lpp-OmpA-metallothionein. وستكون تجارب التمرير طويلة المدى مطلوبة لتحديد ما إذا كان التكامل الكروموسومي يوفر الاستقرار الجيني المتوقع في ظل ظروف الزراعة ذات الصلة. وقد تسهل الهندسة الجينية الخالية من العلامات جولات لاحقة من التعديل الكروموسومي دون تراكم العديد من العلامات القابلة للاختيار، مما يتيح فرصاً لمزيد من التطوير لبنى جينية متعددة الجينات15,27.
بشكل عام، يوفر هذا البروتوكول إطاراً منهجياً لإنشاء وتقييم سلالة بكتيرية مؤشابة متعددة الجينات، خالية من العلامات، ومدمجة صبغياً. ويمكن تكييف تصميمه النمطي ليتناسب مع تركيبات أخرى من الجينات المرتبطة بالمعادن، أو أنظمة التقرير، أو تطبيقات البيولوجيا التركيبية. ويؤسس العمل الحالي لسير عمل الهندسة والفرز؛ بينما تظل التعبيرات الوظيفية، والاستقرار الجيني طويل الأمد، وتمركز البروتين، وأداء الامتصاص الحيوي للمعادن الثقيلة بحاجة إلى تحقق تجريبي قبل استخلاص استنتاجات تتعلق بالتطبيقات البيئية أو تطبيقات المعالجة الحيوية.
الإفصاحات
يصرح المؤلفون بأنه لا توجد لديهم تضاربات في المصالح.
شكر وتقدير
تم دعم هذا العمل من خلال منحة بحثية، AP/3/2/2018/CG/33، من جامعة كولومبو.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 0.22 μm مرشح غشائي | ThermoFisher Scientific | 596-3320 | يرجى تزويدي بالنص المصدر المراد ترجمته. |
| مؤشر DNA بحجم 1 كيلوباز | Promega Corporation | G5711 | نظرًا لعدم توفر نص مصدر للترجمة، يرجى تزويدي بالنص العلمي أو التعليمي المطلوب ترجمته من الإنجليزية إلى العربية، وسأقوم بتنفيذه بدقة وفقًا للمعايير المهنية والأكاديمية المحددة في التعليمات. |
| سلم الحمض النووي (DNA ladder) بقياس 10 كيلو قاعدة | لا ينطبق | يرجى تقديم النص المراد ترجمته. | مؤشر الحجم الجزيئي المستخدم في الشكل 6 |
| سلم الحمض النووي (DNA ladder) بحجم 100 زوج قاعدي | لا ينطبق | نظرًا لعدم توفر نص مصدر للترجمة، يرجى تزويدي بالنص الذي ترغب في ترجمته من الإنجليزية إلى العربية وفقًا للمعايير العلمية والأكاديمية المذكورة. | مؤشر الحجم الجزيئي المستخدم في الشكل 5 |
| منظم تفاعل إنزيم T4 DNA ligase بتركيز 10X | Promega Corporation | C1263 | يرجى تقديم النص المصدر باللغة الإنجليزية لكي أتمكن من ترجمته إلى اللغة العربية وفقاً للمعايير العلمية والأكاديمية المحددة. |
| 6× محلول تحميل الحمض النووي الريبوزي منقوص الأكسجين (DNA loading buffer) | يرجى تزويدي بالنص المراد ترجمته. أنا مستعد لترجمة المحتوى العلمي والتعليمي الخاص بـ JoVE من الإنجليزية إلى العربية بدقة أكاديمية وبما يتوافق مع المعايير المذكورة. | لا يوجد نص متاح للترجمة. يرجى تزويدي بالنص المصدر باللغة الإنجليزية للبدء في ترجمته إلى العربية وفقاً للمعايير العلمية والأكاديمية المحددة. | تُستخدم في الفصل الكهربائي لهلام الأجاروز |
| أجاروز | التصميمات الجزيئية | A113-3 | لم يتم توفير نص لترجمته. يرجى تزويدي بالنص المصدر باللغة الإنجليزية لنبدأ عملية الترجمة العلمية. |
| أسيتات الأمونيوم | لا ينطبق | لا ينطبق | يُحضّر كمحلول بتركيز 7.5 مولار لاستخلاص الحمض النووي الريبوزي منقوص الأكسجين الجينومي (genomic DNA) |
| أمبيسيلين | ThermoFisher Scientific | J60977.14 | يرجى تزويدي بالنص المراد ترجمته، وسأقوم بصياغته باللغة العربية الأكاديمية المتخصصة وفقاً للمعايير العلمية المتبعة في محتوى JoVE. |
| إنزيم القطع BamHI | New England BioLabs | R0136S | يرجى تقديم النص المصدر المراد ترجمته. |
| كلوريد الكادميوم | ThermoFisher Scientific | 219141000 | بما أنه لم يتم توفير نص مصدر للترجمة، يرجى تزويدي بالنص الإنجليزي الذي ترغب في ترجمته إلى اللغة العربية وفقاً للمعايير المهنية والعلمية المذكورة في التعليمات. |
| كلوريد الكالسيوم | ThermoFisher Scientific | 012316.A7 | يرجى تزويدي بالنص المصدر الذي ترغب في ترجمته. |
| جهاز الطرد المركزي | ThermoFisher Scientific | Heraeus Fresco 21 / 75002478 | نظرًا لعدم وجود نص مصدر في طلبك، يرجى تزويدي بالمحتوى الذي ترغب في ترجمته. سأقوم فور استلامه بترجمته من الإنجليزية إلى العربية بدقة علمية وأكاديمية، مع الالتزام بكافة المعايير والتعليمات المذكورة في توجيهاتك لضمان تقديم ترجمة احترافية مخصصة للباحثين والمتخصصين. |
| ماء منزوع الأيونات | ThermoFisher Scientific | 751-610 | يرجى تقديم النص المصدر الذي ترغب في ترجمته. |
| صبغة الحمض النووي الآمنة (DNA Safe Stain) | التصميمات الجزيئية | C138 | لم يتم توفير نص للمراجعة أو الترجمة. يرجى تزويدنا بالنص المطلوب ترجمته من اللغة الإنجليزية إلى اللغة العربية. |
| مزيج dNTP | Promega Corporation | U1511 | يرجى تقديم النص المصدر الذي ترغب في ترجمته. |
| معدات الرحلان الكهربائي | BioRad | 1704405 | يرجى تقديم النص المصدر الذي ترغب في ترجمته. بمجرد إرسال المحتوى، سأقوم بترجمته إلى اللغة العربية بدقة علمية وأسلوب أكاديمي متخصص يتناسب مع الباحثين والأطباء والطلاب، مع الالتزام بكافة المعايير والتعليمات المذكورة. |
| كوفيت التثقيب الكهربائي | BioRad | 1652086 | يرجى تقديم النص المراد ترجمته. |
| جهاز التثقيب الكهربائي | BioRad | 1652100 | يرجى تقديم النص المراد ترجمته. |
| Escherichia coli BL21(DE3) | جامعة كولومبو، قسم الكيمياء | بما أنه لم يتم توفير نص مصدري للترجمة، يرجى تزويدي بالنص الإنجليزي الذي ترغب في ترجمته إلى اللغة العربية وفقاً للمعايير العلمية والأكاديمية المحددة. | يرجى تزويدي بالنص المصدر الذي ترغب في ترجمته. أنا مستعد للبدء فور إرسال المحتوى. |
| Escherichia coli MG1655 | قسم علوم وتكنولوجيا الحياة، معهد طوكيو للعلوم، يوكوهاما، اليابان | غير متاح | يرجى تزويدي بالنص المصدر الذي ترغب في ترجمته. أنا جاهز لبدء العمل وفقاً لجميع المعايير والتعليمات المذكورة. |
| Escherichia coli خلايا Pir1 المختصة | ThermoFisher Scientific | C101010 | يرجى تقديم النص المصدر الذي ترغب في ترجمته. أنا مستعد لبدء العمل فور تزويدي بالمحتوى. |
| Escherichia coli خلايا BL21(DE3) المختصة | ThermoFisher Scientific | C600003 | يرجى تقديم النص الذي ترغب في ترجمته. |
| Escherichia coli سلالة JM109 التي تحتوي على بلازميد pQBIT-GFP-T7 | قسم علوم وتكنولوجيا الحياة، معهد طوكيو للعلوم، يوكوهاما، اليابان | نظرًا لعدم وجود نص مصدر، يرجى تزويدي بالنص الإنجليزي الذي ترغب في ترجمته إلى اللغة العربية وفقًا للمعايير العلمية والأكاديمية المذكورة. | يرجى تزويدي بالنص المراد ترجمته. |
| محلول ET المنظم | لا يوجد نص متاح للترجمة. يرجى تزويدي بالنص المصدر باللغة الإنجليزية للبدء في عملية الترجمة العلمية. | لا ينطبق | لتحضير 1 لتر من محلول ET المنظم، أذب 6.06 جم من Tris base و3.72 جم من EDTA في 800 مل تقريبًا من الماء المقطر. اضبط الرقم الهيدروجيني (pH) للوصول إلى القيمة المطلوبة باستخدام HCl، ثم اخلط المزيج جيدًا، وأكمل الحجم النهائي إلى 1 لتر باستخدام الماء المقطر. |
| إيثانول | ThermoFisher Scientific | T038181000CS | يرجى تقديم النص المراد ترجمته. |
| حمض إيثيلين ديامين رباعي حمض الأسيتيك (EDTA) | ThermoFisher Scientific | 17892 | يرجى تزويدي بالنص المصدر الذي ترغب في ترجمته. بمجرد إرسال النص، سأقوم بترجمته من الإنجليزية إلى العربية وفقاً للمعايير العلمية والأكاديمية المحددة في تعليماتك. |
| مجهر فلوري | المجاهر الساحلية | Olympus BX53/ 11679 | لم يتم تقديم نص للمراجعة أو الترجمة. يرجى تزويدي بالنص المصدر باللغة الإنجليزية للبدء في ترجمته إلى اللغة العربية وفقاً للمعايير العلمية والأكاديمية المحددة. |
| جهاز الفصل الكهربائي للهلام (جيل إلكتـروفوريسيس) | Bio Rad | 1704405 | نظرًا لعدم وجود نص مصدر، يرجى تزويدي بالنص الإنجليزي الذي ترغب في ترجمته إلى اللغة العربية وفقًا للمعايير العلمية والأكاديمية المذكورة. |
| حمض الخليك الثلجي | MilliporeSigma | PHR1748 | يرجى تقديم النص المراد ترجمته. |
| جليسرول | MilliporeSigma | G5516 | يرجى تقديم النص الذي ترغب في ترجمته. |
| ثيوسيانات الغوانيدين | ThermoFisher Scientific | 433941000 | يرجى تزويدي بالنص المراد ترجمته. |
| حمض الهيدروكلوريك (HCl) | MilliporeSigma | 1.00317 | يرجى تقديم النص المصدر الذي ترغب في ترجمته. أنا مستعد للبدء فور تزويدي بالمحتوى العلمي. |
| كاناميسين | ThermoFisher Scientific | 15160054 | يرجى تزويدي بالنص المصدر الذي ترغب في ترجمته. أنا مستعد لبدء العمل فور إرسال المحتوى. |
| إل-أرابينوز | ThermoFisher Scientific | 365185000 | يرجى تزويدي بالنص المصدر باللغة الإنجليزية لكي أتمكن من ترجمته إلى اللغة العربية وفقاً للمعايير العلمية والأكاديمية المحددة. |
| نترات الرصاص | ThermoFisher Scientific | 211565000 | يرجى تقديم النص المراد ترجمته. |
| لوريا–آجار بيرتاني (LB) | التصاميم الجزيئية | C120 | يرجى تقديم النص المصدر المراد ترجمته. |
| لوريا–مرق بيرتاني (LB) | التصاميم الجزيئية | C121 | يرجى تزويدي بالنص المصدر الذي ترغب في ترجمته. بمجرد إرسال النص، سأقوم بترجمته بدقة وفقاً للمعايير العلمية والأكاديمية المحددة. |
| محلول التحلل المنظم | لا ينطبق | لا ينطبق | لتحضير محلول التحلل المنظم (lysis buffer)، اخلط الأحجام المناسبة من المحاليل المخزنة من NaOH بتركيز 5 مولار وSDS بتركيز 20% (وزن/حجم) للحصول على تركيزات نهائية تبلغ 0.2 عياري من NaOH و1% (وزن/حجم) من SDS. اضبط الحجم النهائي المطلوب باستخدام الماء المقطر واخلط المزيج جيداً. |
| ليزوزيم | ThermoFisher Scientific | 89833 | يرجى تقديم النص الذي ترغب في ترجمته. |
| كلوريد المغنيسيوم (MgCl2)2) | لا يوجد نص متوفر للترجمة. يرجى تزويدي بالنص الإنجليزي المراد ترجمته. | لم يتم توفير نص لترجمته. يرجى تزويدي بالمحتوى المراد ترجمته من اللغة الإنجليزية إلى اللغة العربية. | يُستخدم بتركيز نهائي قدره 1.5 ميلي مولار في تفاعلات PCR |
| محلول التعادل | لم يتم توفير نص لترجمته. يرجى إرسال النص المصدر باللغة الإنجليزية لبدء عملية الترجمة العلمية المتخصصة. | لا ينطبق | قم بتحضير محلول منظم التعادل، باستخدام خلات البوتاسيوم بتركيز 3 مولار وحمض الخليك الثلجي. اضبط المحلول للوصول إلى الحجم النهائي المطلوب باستخدام الماء المقطر وامزجه جيداً. |
| إنزيم التقييد NotI | New England BioLabs | R0189S | يرجى تقديم النص المراد ترجمته. |
| pCP20 | قسم علوم وتكنولوجيا الحياة، معهد طوكيو للعلوم، يوكوهاما، اليابان | غير متاح | يرجى تزويدي بالنص المصدر الذي ترغب في ترجمته. أنا جاهز لبدء العمل فور إرسال المحتوى. |
| جهاز تفاعل البوليميراز المتسلسل (PCR) | ThermoFisher Scientific | Applied Biosystems MiniAmp / A37834 | بما أنه لم يتم توفير نص مصدر للترجمة، يرجى تزويدي بالنص الذي ترغب في ترجمته من الإنجليزية إلى العربية، وسأقوم بتنفيذه وفقاً للمعايير العلمية والأكاديمية المحددة. |
| بلازميد pET-21a في بكتيريا E. coli BL21(DE3) | جامعة كولومبو، قسم الكيمياء | نظرًا لعدم توفر نص مصدر للترجمة، يرجى تزويدي بالنص الذي ترغب في ترجمته من الإنجليزية إلى العربية وفقًا للمعايير العلمية والتقنية المحددة. | يرجى تقديم النص المراد ترجمته. |
| محلول ملحي منظم بالفوسفات | MilliporeSigma | P4474 | يرجى تزويدي بالنص المصدر الذي ترغب في ترجمته. بمجرد إرسال النص، سأقوم بترجمته من الإنجليزية إلى العربية وفقاً للمعايير العلمية والأكاديمية الدقيقة المذكورة في التعليمات. |
| pKD46 | Creative Biogene | OVT2612 | يرجى تقديم النص المصدر المراد ترجمته. |
| pKIKOArsBKm | Addgene | 46766 | يرجى تزويدي بالنص الذي ترغب في ترجمته. أنا جاهز للبدء في تحويل المحتوى العلمي من الإنجليزية إلى العربية وفقاً للمعايير المهنية والأكاديمية المحددة. |
| أسيتات البوتاسيوم | MilliporeSigma | 236497 | يرجى تقديم النص المصدر الذي ترغب في ترجمته. |
| محلول منظم لإنزيم القطع | لم يتم توفير نص للترجمة. يرجى تزويدي بالنص الإنجليزي الذي ترغب في ترجمته إلى العربية. | لم يتم توفير نص للمراجعة. يرجى تزويد النص الإنجليزي المراد ترجمته. | تُستخدم في تفاعلات الهضم بإنزيمات القطع |
| إنزيم التقييد SacI | New England BioLabs | R0156 | يرجى تقديم النص المصدر المراد ترجمته. |
| حضّانة هزازة | تكنولوجيا البلورات والصناعات البلورية | IS-A6 | يرجى تزويدي بالنص المصدر الذي ترغب في ترجمته. أنا مستعد لبدء العمل فور إرسال المحتوى. |
| خلات الصوديوم | ThermoFisher Scientific | A13184.30 | يرجى تقديم النص المصدر المراد ترجمته. |
| دوديسيل كبريتات الصوديوم (SDS) | ThermoFisher Scientific | 15525017 | يرجى تزويدي بالنص المراد ترجمته. |
| هيدروكسيد الصوديوم (NaOH) | MilliporeSigma | 567530 | يرجى تقديم النص المصدر المراد ترجمته. |
| وسط مرق سوبر أوبتمال (SOB) | MilliporeSigma | H8032 | يرجى تقديم النص المصدر المراد ترجمته. |
| وسط SOC (الوسط فائق الأمثل مع الكابت الكاتابولي) | ThermoFisher Scientific | J60255.AK | يرجى تقديم النص المصدر باللغة الإنجليزية لكي أتمكن من ترجمته إلى اللغة العربية وفقاً للمعايير العلمية والأكاديمية المحددة. |
| إنزيم تي 4 دي إن إيه ليغيز (T4 DNA ligase) | Promega Corporation | M1801 | نظرًا لعدم توفر نص مصدر للترجمة، يرجى تزويدي بالنص الإنجليزي المراد ترجمته من محتوى JoVE العلمي والتعليمي، وسأقوم بترجمته بدقة واحترافية إلى اللغة العربية وفقًا للمعايير الأكاديمية المحددة. |
| محلول التامبون TAE (محلول منظم تريس-أسيتات-إيديتات) | ThermoFisher Scientific | B49 | يرجى تزويدي بالنص المصدر المراد ترجمته. |
| إنزيم Taq DNA polymerase | Promega Corporation | M3001 | نظرًا لعدم توفر نص مصدر للترجمة، يرجى تزويدي بالنص الإنجليزي الذي ترغب في ترجمته إلى اللغة العربية وفقًا للمعايير العلمية والأكاديمية المذكورة. |
| محلول TE المنظم | MilliporeSigma | 93283 | يرجى تقديم النص المصدر المراد ترجمته. |
| فينول متوازن بمحلول TE | ThermoFisher Scientific | 15513039 | يرجى تقديم النص المراد ترجمته. |
| تريس قاعدي (Tris base) | لم يتم توفير نص للترجمة. يرجى تزويدي بالنص المصدر باللغة الإنجليزية للبدء في ترجمته إلى اللغة العربية وفقاً للمعايير العلمية والأكاديمية المحددة. | لا ينطبق | تُستخدم لتحضير محلول ET المنظم |
| محلول منظم عام لتفاعل البوليميراز المتسلسل (PCR) | شركة بروميجا (Promega Corporation) | M7911 | يرجى تقديم النص الذي ترغب في ترجمته. |
| جهاز التصوير بالأشعة فوق البنفسجية (UV trans-illuminator) | لاب إكستشينج (Labexchange) | TFX-35M, 021425 | يرجى تقديم النص المصدر الذي ترغب في ترجمته. |
| مقياس الطيف الضوئي للأشعة فوق البنفسجية والمرئية | الاختبارات الميكروبيولوجية | Jenway 6300, TE15 | يرجى تقديم النص المصدر الذي ترغب في ترجمته. |
| حمام مائي | ThermoFisher Scientific | TSGP05 | يرجى تقديم النص المصدر المراد ترجمته. |
| إنزيم القطع XhoI | New England BioLabs | R0146S | يرجى تزويد النص المصدر المراد ترجمته. |
| كلوريد الزنك | ThermoFisher Scientific | A16281.36 | يرجى تقديم النص المصدر المراد ترجمته. |
| البادئات | |||
| البادئ الأمامي لـ cadD (SD-EF) | لا ينطبق | لا يوجد | 5′-GAATTCATGATTC AGACTATTGTAACTG-3′ |
| البادئ العكسي لـ cadD (SE-XHR) | لا ينطبق | نظرًا لعدم وجود نص مصدر متاح للترجمة، يرجى تزويدي بالنص الذي ترغب في ترجمته من الإنجليزية إلى العربية، وسأقوم بمعالجته وفقًا للمعايير العلمية والأكاديمية المحددة. | 5′-CTCGAGAAATATAA 3'-ATCCTAAAATTGTTTG′ |
| بادئ أمامي لـ cadA (PD-BF) | غير متاح | نظرًا لعدم وجود نص مصدري لترجمته، يرجى تزويدي بالنص الذي ترغب في ترجمته من الإنجليزية إلى العربية، وسأقوم بتنفيذه وفقًا للمعايير العلمية والأكاديمية المحددة. | 5′-GGATCCGACACAAT GAAACACGAAGA-3′ |
| بادئ عكسي لـ cadA (PF-XHR) | نظرًا لعدم توفر نص مصدر للترجمة، يرجى تزويدي بالنص الذي ترغب في ترجمته من الإنجليزية إلى العربية وفقًا للمعايير العلمية والأكاديمية المحددة. | لا ينطبق | 5′-CCGCTCGAGCGGCA TGTAATTTTTCATTTTGA GTAAGCGAAG-3′ |
| البادئ الأمامي للميتوكوندريا (SEmtF) | بما أنه لا يوجد نص مصدر للترجمة، يرجى تزويدي بالنص الذي ترغب في ترجمته من الإنجليزية إلى العربية وفقاً للمعايير المهنية المذكورة. | لا ينطبق | 5′-GGAATTCATGGAAAAAT GTGCGAGACCGAAC-3′ |
| بادئ عكسي لـ mt (SEmtR) | لا ينطبق | لا ينطبق | 5′-CCGCTCGAGTGCAGTTG CACAGCTACAATC-3′ |
| اسم البرنامج/الأداة | الإصدار/الخادم | رابط URL | تاريخ الوصول |
| أدوات ExPASy | خادم TMPRED | https://embnet.vital-it.ch/cgi-bin/TMPRED_form_parser | 30-01-2023 |
| ترجمة ExPASy | أداة الترجمة من ExPASy | https://web.expasy.org/translate/ | يرجى تزويدي بالنص المصدر المراد ترجمته. |
| I-TASSER | لم يتوفر نص للمراجعة. يرجى تقديم النص الإنجليزي المراد ترجمته. | https://zhanggroup.org/I-TASSER/ | 24-02-2023 |
| بنك الجينات NCBI (NCBI GenBank) | قاعدة بيانات GenBank | https://www.ncbi.nlm.nih.gov/genbank/ | لم تتوفر بيانات لترجمتها. يرجى تقديم النص المصدر. |
| SnapGene | إصدار 7.1.2 | لا ينطبق | غير متاح |
| TMHMM | الإصدار 2.0 | https://services.healthtech.dtu.dk/services/TMHMM-2.0/ | 16-01-2023 |
المراجع
- Volesky B. Detoxification of metal-bearing effluents: biosorption for the next century. Hydrometallurgy. 2001;59(2-3):203-16.
- Ayangbenro AS, Babalola OO. A new strategy for heavy metal polluted environments: a review of microbial biosorbents. Int J Environ Res Public Health. 2017;14(1):94.
- Das S, Dash HR, Chakraborty J. Genetic basis and importance of metal resistant genes in bacteria for bioremediation of contaminated environments with toxic metal pollutants. Appl Microbiol Biotechnol. 2016;100(7):2967-84.
- Volesky B. Biosorption of heavy metals. Biotechnol Prog. 1995;11(3):235-50.
- Barkay T, Miller SM, Summers AO. Bacterial mercury resistance from atoms to ecosystems. FEMS Microbiol Rev. 2003;27(2-3):355-84.
- Cervantes C, et al. Interactions of chromium with microorganisms and plants. FEMS Microbiol Rev. 2001;25(3):335-47.
- Cai L, Liu G, Rensing C, Wang G. Genes involved in arsenic transformation and resistance associated with different levels of arsenic-contaminated soils. BMC Microbiol. 2009;9:4.
- Silver S, Phung LT. Genes and enzymes involved in bacterial oxidation and reduction of inorganic arsenic. Appl Environ Microbiol. 2005;71(2):599-608.
- Kumari WMNH, et al. Characterization of a Bacillus megaterium strain with metal bioremediation potential and in silico discovery of novel cadmium binding motifs in the regulator, CadC. Appl Microbiol Biotechnol. 2021;105(6):2573-86.
- Hamer DH. Metallothionein. Annu Rev Biochem. 1986;55:913-51.
- Kazy SK, D’Souza SF, Sar P. Uranium and thorium sequestration by a Pseudomonas sp.: mechanism and chemical characterization. J Hazard Mater. 2009;163(1):65-72.
- Yan G, Viraraghavan T. Heavy-metal removal from aqueous solution by fungus Mucor rouxii. Water Res. 2003;37(18):4486-96.
- Pazirandeh M, Wells B, Ryan RL. Development of bacterium-based heavy metal biosorbents: enhanced uptake of cadmium and mercury by Escherichia coli expressing a metal binding motif. Appl Environ Microbiol. 1998;64(10):4068-72.
- Gao H, Jiang X, Pogliano K, Aronson AI. The E1β and E2 subunits of the Bacillus subtilis pyruvate dehydrogenase complex are involved in regulation of sporulation. J Bacteriol. 2002;184(10):2780-8.
- Stathopoulos C, Georgiou G, Earhart CF. Characterization of Escherichia coli expressing an Lpp′OmpA(46-159)-PhoA fusion protein localized in the outer membrane. Appl Microbiol Biotechnol. 1996;45(1-2):112-9.
- Datsenko KA, Wanner BL. One-step inactivation of chromosomal genes in Escherichia coli K-12 using PCR products. Proc Natl Acad Sci U S A. 2000;97(12):6640-5.
- Yu D, et al. An efficient recombination system for chromosome engineering in Escherichia coli. Proc Natl Acad Sci U S A. 2000;97(11):5978-83.
- Sabri S, et al. Knock-in/Knock-out (KIKO) vectors for rapid integration of large DNA sequences, including whole metabolic pathways, onto the Escherichia coli chromosome at well-characterised loci. Microb Cell Fact. 2013;12:60.
- Wang J, et al. Converting Escherichia coli MG1655 into a chemical overproducer through inactivating defense system against exogenous DNA. Synth Syst Biotechnol. 2020;5(4):333-42.
- Cherepanov PP, Wackernagel W. Gene disruption in Escherichia coli: TcR and KmR cassettes with the option of Flp-catalyzed excision of the antibiotic-resistance determinant. Gene. 1995;158(1):9-14.
- Liu M, et al. Metabolic engineering of Escherichia coli to improve recombinant protein production. Appl Microbiol Biotechnol. 2015;99(24):10367-77.
- Persad AK, Williams ML, LeJeune JT. Rapid loss of a green fluorescent plasmid in Escherichia coli O157. AIMS Microbiol. 2017;3(4):872-84.
- Jeiranikhameneh M, et al. Designing novel construction for cell surface display of protein E on Escherichia coli using non-classical pathway based on Lpp-OmpA. AMB Express. 2017;7(1):53.
- Dissanayake DMDC, Kumari WMNH, Chandrasekharan NV, Wijayarathna CD. Isolation of heavy metal-resistant Staphylococcus epidermidis strain TWSL_22 and evaluation of heavy metal bioremediation potential of recombinant E. coli cloned with isolated cadD. FEMS Microbiol Lett. 2023;370:fnad092.
- Bryant JA, Sellars LE, Busby SJW, Lee DJ. Chromosome position effects on gene expression in Escherichia coli K-12. Nucleic Acids Res. 2014;42(18):11383-92.
- Busuioc M, Ciofu O, Høiby N. Cellular responses to environmental stress in bacteria. FEMS Microbiol Rev. 2010;34(6):1042-64.
- Outten FW, Outten CE, Hale J, O'Halloran TV. Transcriptional activation of an Escherichia coli copper efflux regulon by the chromosomal MerR homologue, CueR. J Biol Chem. 2001;276(9):6346-54.
- Zaslaver A, et al. Just-in-time transcription program in metabolic pathways. Nat Genet. 2004;36(5):486-91.
- Thomason LC, Costantino N, Shaw DV, Court DL. Multicopy plasmid modification with phage lambda Red recombineering. Plasmid. 2007;58(2):148-58.