نقدم سير عمل لنضوب الانبعاث المستحث ثلاثي الأبعاد (3D STED) يجمع بين اختبارات الامتصاص والاضطراب الدوائي لتصوير حركة بروتينات الغشاء في أقراص تخيل الجناح السليمة في ذبابة Drosophila بدقة فائقة شبه متساوية المناحي.
مقالة منهجية
تصوير نقل البروتين في سياق الأنسجة الكاملة باستخدام المجهر النانوي فائق الدقة في ذبابة Drosophila
في هذه المقالة
ملخص
الملخص
تُستخدم ذبابة الفاكهة Drosophila melanogaster على نطاق واسع لدراسة مسارات الإشارات الخلوية والتنموية المحفوظة in vivo. تعتمد العديد من مسارات الإشارات، بما في ذلك إشارات Wnt، على عمليات إفراز، والالتقام الخلوي، والنقل داخل الخلايا التي يتم تنظيمها بدقة. ومع ذلك، فإن تصور ديناميكيات البروتينات المرتبطة بالغشاء داخل الأنسجة الظهارية السليمة، مثل أقراص الجناح التخيلية، لا يزال يمثل تحدياً بسبب الحجم الصغير والتنظيم العمودي الكثيف لهذه الخلايا. نقدم هنا بروتوكولاً يجمع بين مجهر استنفاد الانبعاث المستحث ثلاثي الأبعاد (3D STED) ومقايسات الامتصاص والاضطرابات الدوائية في أقراص جناح Drosophila التخيلية. يتيح سير العمل هذا تصويراً فائق الدقة لديناميكيات البروتينات المرتبطة بالغشاء داخل بنية النسيج السليمة بدقة تقترب من التماثل في جميع الاتجاهات. وباستخدام الخلايا المفرزة لبروتين Wingless كمثال، نقوم بتصور تموضع ونقل بروتين Wingless (Wg) عند الغشاء القمي. ولتحليل عمليات النقل الديناميكية، يتم دمج سير عمل التصوير مع مقايسة امتصاص تميز البروتينات التي تخضع للإفراز وإعادة الامتصاص الداخلي ضمن نافذة زمنية محددة. وبالاقتران مع المثبطات الكيميائية والتصوير باستخدام مجهر 3D STED، يتيح هذا النهج التحليل الوظيفي لديناميكيات النقل الغشائي. ومعاً، يوفر سير العمل هذا إطاراً متعدد الاستخدامات لدراسة تنظيم الغشاء ونقل البروتينات بدقة تحت خلوية في عينات أنسجة كاملة من Drosophila.
المقدمة
تُعد ذبابة الفاكهة Drosophila melanogaster كائناً نموذجياً واسع الاستخدام في بيولوجيا التطور، والتطور، والسلوك، والأبحاث الطبية الحيوية، بما في ذلك دراسة السرطان والأمراض البشرية الأخرى1,2. وتتسم العديد من مسارات الإشارات الخلوية الأساسية بأنها محفوظة للغاية بين Drosophila والفقاريات، مما يجعل هذا النظام النموذجي ذا قيمة خاصة لاستقصاء الآليات البيولوجية المحفوظة in vivo.
في هذا البروتوكول، يُستخدم القرص التخيلي لجناح ذبابة Drosophila كنظام نموذجي لدراسة الديناميكيات المرتبطة بالغشاء ضمن مسار إشارات Wingless (Wg)/Wnt. تعتمد العديد من مسارات الإشارات التنموية على إفراز منظم بدقة، وتمركز غشائي، واندخال خلوي، ونقل داخل خلوي للجزيئات الإشارية3. وينطبق هذا أيضاً على الحدود الظهرية البطنية (DV) للقرص التخيلي للجناح، حيث يتم إفراز Wg من الخلايا المنتجة عند الغشاء القمي ويُنقل إلى الخلايا المستقبلة المجاورة من خلال التفاعلات مع الجليكينات4,5,6,7. وفي الخلايا المستقبلة، يرتبط Wg بمستقبلات Frizzled وينشط إشارات Wnt المصبة. وبالإضافة إلى مجموعة Wg التي تُنقل بعيداً عن الحدود الظهرية البطنية، يتم إعادة استيعاب جزء من Wg بواسطة الخلايا المنتجة ونقله عبر النظام الإندوسومي إلى وجهات داخل خلوية متميزة8,9,10. وبناءً على ذلك، توفر الخلايا المنتجة لـ Wg عند الحدود الظهرية البطنية نموذجاً ممتازاً لاستقصاء نقل الغشاء، وديناميكيات الإفراز، والآليات الخلوية التي تنظم نشاط الإشارات in vivo.
ومع ذلك، فإن البنية العمودية الشديدة للخلايا الظهارية في القرص الخيالي تجعل التصوير أمراً صعباً، حيث تتطلب دقة أعلى وأكثر تماثلاً مما يمكن أن يوفره المجهر البؤري التقليدي لتمييز الحويصلات الفردية. وللتغلب على هذه القيود، قمنا بتحسين ظروف تحضير الأنسجة والصبغ والتصوير للمجهر النانوي فائق الدقة في أنسجة Drosophila السليمة. وتحديداً، وضعنا سير عمل للمجهر النانوي ثلاثي الأبعاد باستنفاد الانبعاث المستحث (3D STED) والذي يتيح التصوير المتعامد لتمركز البروتينات المرتبطة بالغشاء على طول المحور القمي القاعدي للظهارة11,12. ويعد 3D STED مناسباً بشكل خاص لهذا التطبيق لأنه يوفر دقة محورية محسنة مقارنة بالمجهر البؤري التقليدي، مما يسمح بتصوير البنى الدقيقة تحت الخلوية في الأنسجة المكتظة13,14. وباستخدام هذا النهج، قمنا بتحليل منطقة الغشاء القمي للخلايا المفرزة لـ Wg عند الحدود الظهرية البطنية (DV boundary) للقرص الخيالي للجناح، ورصدنا Wg في الغشاء القمي جنباً إلى جنب مع بروتينات أخرى مرتبطة بالغشاء، مثل Discs large 1 (Dlg1) أو Evenness interrupted/Wntless (Evi/Wls).
لمزيد من الاستقصاء في ديناميكيات نقل البروتين، تم دمج سير عمل التصوير هذا مع مقايسة امتصاص تم إثباتها مسبقاً15. تتيح هذه المقايسة الكشف الانتقائي عن البروتينات التي خضعت للإفراز ثم إعادة الامتصاص اللاحقة ضمن نافذة زمنية محددة، مما يسمح بتصوير مجموعة ديناميكية من البروتينات التي تنتقل عبر الغشاء البلازمي. ولتوسيع نطاق فائدتها، تم دمج مقايسة الامتصاص مع اضطرابات دوائية، مما سمح بتحليل كيفية تأثير عمليات خلوية محددة على ديناميكيات النقل الغشائي. وتوفر هذه النهج مجتمعة إطاراً قوياً لدراسة آليات نقل البروتين وإفرازه وإشاراته في سياق الأنسجة الأصلي بدقة مكانية عالية.
علاوة على ذلك، يتوافق هذا البروتوكول مع مجموعة واسعة من طرق الصبغ، بما في ذلك بروتوكولات التألق المناعي القياسية. كما يمكن دمج الأصباغ الفلورية، مما يوسع نطاق التراكيب الخلوية والأهداف الجزيئية التي يمكن تصويرها. وفي جميع الحالات، يجب اختيار الفلوروفورات بحيث تكون متوافقة مع تقنية مجهر STED النانوي. ورغم أن البروتوكول الحالي يركز على تصوير STED ثلاثي الأبعاد ثنائي اللون (الأحمر والأحمر البعيد)، إلا أنه يمكن تكييف سير العمل بسهولة ليشمل فلوروفورات إضافية وتكوينات تصوير بديلة، مما يزيد من مرونته لمختلف التطبيقات التجريبية.
يؤسس هذا البروتوكول، في مجمله، إطاراً متعدد الاستخدامات للجمع بين مجهر STED النانوي فائق الدقة ونهج الاضطراب الوظيفي في أنسجة Drosophila السليمة. ويوفر سير العمل هذا أساساً للدراسات المستقبلية التي تبحث في تنظيم الغشاء، ونقل البروتين، وديناميكيات الإشارات بدقة دون خلوية ضمن بيئات نسيجية معقدة.
البروتوكول
1. اختبار الامتصاص ومعالجة المثبطات المدمجة ex vivo
ملاحظة: يرجى الرجوع إلى جدول المواد للحصول على معلومات مفصلة حول المواد الكيميائية والمواد المستخدمة.
- تحضير الأوساط والمحاليل
- قم بتحضير وسط SchM+.
- أضف مصل جنين البقر (FBS) بنسبة 4% إلى وسط شنايدر للحشرات (Schneider’s insect medium) وامزجهما جيداً.
ملاحظة: يجب تحضير وسط SchM+ حديثاً في يوم التجربة.
- أضف مصل جنين البقر (FBS) بنسبة 4% إلى وسط شنايدر للحشرات (Schneider’s insect medium) وامزجهما جيداً.
- التحضير 1× محلول ملحي منظم بالفوسفات مع التويدين (PBS-T).
- أضف 0.1% من Triton X-100 إلى 1× المحلول الملحي المنظم بالفوسفات (PBS) وامزجه جيداً.
- تجهيز محاليل المركبات الكيميائية.
تنبيه: تُعتبر العديد من المركبات الكيميائية التالية سامة للخلايا، لذا فمن الضروري التعامل معها بحذر داخل خزانة استخلاص الغازات (fume hood) باستخدام المعدات المناسبة واتباع طرق التخلص السليمة من النفايات.- Dynasor2-24: يتم إذابة Dynasor2-24 (المعروف أيضاً باسم Dyngo-4a) في ثنائي ميثيل سلفوكسيد (DMSO)، وفقاً لتعليمات الشركة المصنعة، لتحضير محلول مخزون بتركيز 10 ملي مولار. ولغرض المعالجة، يُخفف المحلول المخزون بنسبة 1:1000 أو 1:2000 في وسط SchM+ للحصول على تركيزات نهائية قدرها 10 µM أو 5 µMعلى التوالي.
- ضابط DMSO: يتم تخفيف DMSO بنسبة 1:1000 في وسط SchM+ ثم يُستخدم. 200 µL كضابط سلبي في كل تجربة.
- قم بتحضير منظم حمضي لاختبار الامتصاص.
- حضّر محلولاً من الجليسين بتركيز 0.1 مولار في الماء المقطر (dH2O).2أو.
- اضبط الرقم الهيدروجيني (pH) إلى 3.5 باستخدام حمض الهيدروكلوريك (HCl) بتركيز 37%.
- قم بتحضير وسط SchM+.
- جمع العينات
- يتم تربية الذباب في 25 °C مع دورة ضوئية/مظلمة تبلغ 12/12 ساعة.
- اجمع اليرقات في الطور اليرقي الثالث (L3) من القوارير باستخدام الملقط، وضعها في لوح تلوين زجاجي مكون من 12 بئراً، بحيث تكون كل بئر مملوءة بوسط SchM+.
ملاحظة: قم بتحضير كمية كافية من الأنسجة لضمان إدراج عينات ضابطة دائماً في كل مكرر تجريبي. - افتح اليرقات من الطرف الخلفي واقلبها.
- أزل الأمعاء والجسم الدهني من نسيج اليرقة المقلوب بأكبر قدر ممكن من الدقة، مع الحفاظ على غمر النسيج في محلول +SchM.
- ثم انقل النسيج إلى أنبوب PCR سعة 0.2 مل يحتوي على SchM+.
ملاحظة: نضع من 6 إلى 7 يرقات مقلوبة فقط في كل أنبوب تفاعل البوليميراز المتسلسل (PCR) لضمان الغمر الكامل وحرية حركة الأنسجة.
ملاحظة: يجب تجنب ملء الأنبوب بأنسجة زائدة عن الحد لمنع ظهور شوائب اصطناعية أثناء الصبغ. راجع الـ جدول المواد للحصول على معلومات مفصلة حول المواد الكيميائية والمواد المستخدمة في هذه الدراسة.
- خارج الجسم الحي المعالجة بالمثبط وفحص الامتصاص
- أزل وسط SchM+ من العينة.
- أضف محلول المركب الكيميائي الذي تم تحضيره مسبقاً حسب الحاجة، على سبيل المثال: 200 µL من 5 µM محلول Dynasor2-24.
تنبيه: تُعتبر هذه المركبات الكيميائية سامة للخلايا، لذا من الضروري التعامل معها بحذر داخل خزانة استخلاص الأدخنة باستخدام المعدات المناسبة والتخلص من النفايات بشكل سليم. - أضف 200 µL محلول DMSO (1:1000) إلى العينة الضابطة، وهو ما يمثل ضابطاً سالباً.
- لإجراء مقايسة الامتصاص (Witte et al., 202115)، أضف الجسم المضاد الأولي إلى محلول العقار: للكشف عن Wg استخدم الجسم المضاد anti-Wg بتخفيف 1:20، وللكشف عن البروتينات المرتبطة بالبروتين الفلوري الأخضر (GFP)، استخدم الجسم المضاد anti-GFP بتخفيف 1:40.
- تُحضن العينات في درجة حرارة الغرفة (RT) لمدة 90 دقيقة في الظلام.
ملاحظة: يُعد اختبار الامتصاص (Uptake assay) اختيارياً ويمكن استبعاده بسهولة من البروتوكول إذا لم تكن هناك حاجة إليه. كما يمكن استخدام مركبات كيميائية أخرى اعتماداً على السؤال التجريبي. ويُوصى بمعايرة المركب وتحديد التركيز الأمثل لكل تطبيق على حدة. يرجى الرجوع إلى جدول المواد للحصول على معلومات مفصلة حول المواد الكيميائية والمواد المستخدمة في هذه الدراسة.
- تثبيت العينة
- أزل محلول الصبغ المستخدم في الخطوة 1.3 فور انتهاء وقت الحضانة.
- (اختياري) اشطف العينات مرتين بـ 200 µL من SchM+.
- لإزالة الجسم المضاد الأولي في مقايسة الالتقاط بشكل صحيح، اغسل النسيج لمدة 5 دقائق باستخدام المحلول المنظم الحمضي في درجة حرارة الغرفة (RT).
- اغسل سريعاً 3× لمدة 3 دقائق باستخدام +SchM.
- تثبيت العينات في فورمالديهيد بتركيز 4% في محلول SchM+ لمدة 30 دقيقة في درجة حرارة الغرفة.
- تحضين الجسم المضاد الأولي
ملاحظة: إذا كانت هناك حاجة إلى جسم مضاد أولي إضافي إلى جانب الجسم المضاد المستخدم في مقايسة الامتصاص، فيجب تطبيقه في هذه المرحلة ومعالجته وفقاً لإجراءات صبغ الكيمياء النسيجية المناعية القياسية.- قم بحجب الأنسجة باستخدام مصل ماعز طبيعي بتركيز 4% في 1× محلول PBS-T لمدة 30 دقيقة على الأقل في درجة حرارة الغرفة مع الرج الخفيف.
- إزالة محلول الحجب.
- أضف محلول الجسم المضاد الأولي في 1× محلول PBS بالتركيز المطلوب (أمثلة: anti-wg بنسبة 1:200، أو anti-dlg1 بنسبة 1:50، أو anti-GFP بنسبة 1:200، أو أي جسم مضاد آخر مطلوب)
- حضن العينات عند 4 °C طوال الليل تحت تقليب هادئ.
- (اختياري) يتم تحضين الأجسام المضادة الأولية لمدة لا تقل عن 1.5 ساعة في درجة حرارة الغرفة مع الرج الخفيف.
- ملاحظة: ارجع إلى الـ جدول المواد للحصول على معلومات مفصلة حول المواد الكيميائية والمواد المستخدمة في هذه الدراسة.
- تحضين الجسم المضاد الثانوي
- تخلص من محلول الجسم المضاد الأولي.
ملاحظة: استُخدم محلول الجسم المضاد الأولي في الخطوة 1× يمكن إعادة استخدام المحلول المنظم من الفوسفات (PBS) عدة مرات عند تخزينه في أنبوب تفاعل جديد سعة 1.5 مل في 4 °C. - غسل النسيج 3× 10 دقائق في دقيقة واحدة× محلول PBS-T مع الرج اللطيف.
أضف الأجسام المضادة الثانوية المطلوبة بتخفيف 1:200 في 1× محلول PBS-T مع صبغة Hoechst33342 لصبغ النوى بنسبة 1:2000. تشمل الأجسام المضادة الثانوية لتقنية STED كلاً من: الجسم المضاد للدجاج المضاد للفئران Alexa Fluor 594، والجسم المضاد للماعز المضاد للأرانب Alexa Fluor 594، والجسم المضاد للماعز المضاد للأرانب STAR635P، والجسم المضاد للماعز المضاد للفئران STAR635P. يُرجى الرجوع إلى الـ جدول المواد للحصول على معلومات مفصلة حول المواد الكيميائية والمواد المستخدمة في هذه الدراسة. - تُحضن مع الأجسام المضادة الثانوية طوال الليل في درجة حرارة 4 °C (اختياري: الحضانة لمدة 1.5 ساعة على الأقل مع الرج الخفيف في درجة حرارة الغرفة).
- اغسل النسيج في اليوم التالي 3× 10 دقائق في دقيقة واحدة× في محلول PBS-T مع التقليب اللطيف. أصبحت العينات الآن جاهزة للتثبيت من أجل التصوير المجهري بتقنية STED. راجع سير العمل كاملاً الشكل 1.
ملاحظة: عادةً ما تُصمم بصريات المجهر لـ 23 °C التشغيل، ما لم تكن هناك ظروف أخرى مطلوبة. ويُعد استقرار درجة الحرارة أمرًا بالغ الأهمية، حيث تؤدي التقلبات إلى حدوث انزياح حراري ويمكن أن تؤثر على توقيت الليزر. وتعتبر درجة حرارة الغرفة المستقرة التي تتراوح بين 20-23 °C (≤ ±±1 °C يُنصح بتجنب التقلبات)16، بنسبة 21.5-22 °C وغالباً ما يتم ذلك للتعويض عن الحرارة الناتجة عن المجهر. يجب أن تصل جميع مكونات المجهر إلى حالة التوازن الحراري قبل البدء في التصوير. توفر الحاضنات المثبتة أعلى المنصة تحكماً دقيقاً في درجة حرارة العينة، غير أن أغلفة الاحتواء قد تحبس الحرارة وتزيد من الانزياح. ويعمل التبريد النشط على تحسين الاستقرار. في هذه الدراسة، حافظت حاضنة مصنعة خصيصاً (EMBL Heidelberg) على درجة حرارة بلغت 21.5 ±± 0.05 °C، مما يقلل من الانزياح الحراري ويضمن أداءً مستقراً لتقنية STED ثلاثية الأبعاد.
- تخلص من محلول الجسم المضاد الأولي.
2. تحضير العينات للفحص المجهري والتصوير فائق الدقة بتقنية STED ثلاثية الأبعاد
- تجهيزات المعدات والمواد:
- قم بضبط المجهر.
- تأكد من استخدام مجهر مناسب للتجربة. وفي هذه الحالة، استُخدم مجهر Leica Stellaris 8 STED Falcon.
- استخدم عدسة شيئية مناسبة. في هذه التجربة، استُخدمت العدسة الشيئية HC PL APO 86x/1.20 W motCORR STED white.
- لضمان التصوير السليم، قم بتشغيل منظومة المجهر بالكامل قبل البدء بالتصوير بساعتين على الأقل (راجع الملاحظة بعد الخطوة 1.6.4).
- تحضير أطباق مطلية بالبولي-إل-لايسين.
- قم بتحضير محلول بولي-إل-لايسين (poly-L-lysine) يحتوي على 0.6% من بولي-إل-لايسين، و0.002% من Photo Flo في ماء مقطر (dH).2هـ. قم بتجزئة المحلول وتخزينه لفترة طويلة في درجة حرارة -20 °Cبعد الإذابة، تُحفظ في درجة حرارة 4 °C وإعادة استخدامها حتى 10 مرات.
- أضف 200 µL من محلول بولي-ل-ليزين (poly-L-lysine) إلى قاع شريحة زجاجية غطائية بسماكة 1.5H µ-طبق (∅٣٥ ملم)
- ضع الأطباق مائلة رأسياً للتجفيف.
- بعد جفاف محلول poly-L-lysine تماماً، كرر عملية الطلاء مرة أخرى.
- أضف فواصل من طلاء الأظافر بعناية على جانبين من القاعدة الزجاجية لغطاء الشريحة.
- بعد التثبيت، غطِّ العينات بـ 1.5H round (∅أغطية شرائح (12 مم) (انظر الشكل 2).
- قم بضبط المجهر.
- إعدادات التثبيت لتقنية STED ثلاثية الأبعاد
- ملاحظة: بالنسبة للتصوير النانوي بتقنية STED ثلاثي الأبعاد (راجع الملاحظة بعد الخطوة 2.2.12)، من الضروري مطابقة معاملات الانكسار بين عدسة STED ووسط التثبيت (مثال هنا: عدسة مائية و1× وسط تثبيت مكون من المحلول الملحي المنظم بالفوسفات (PBS).
- ضع العينات في طبق بتري صغير مملوء بـ 1× المحلول الملحي المُنظم بالفوسفات (PBS).
- أضف 15 µL من 1× محلول PBS على شكل قطرة في الطبق المطلي مسبقاً بالبولي-L-لايسين.
- قم بتشريح أقراص الجناح التخيلية من أنسجة اليرقة المتبقية وضعها في 15 µL 1× قطرة من المحلول الملحي المنظم بالفوسفات (PBS).
- تأكد من التصاق أقراص الجناح بالغطاء الزجاجي المطلي وعدم طفوها.
- لا تضغط على الأقراص بأي قوة؛ بل اتركها تهبط على شريحة التغطية بأكبر قدر ممكن من الرفق. ولضمان التوجيه الصحيح، تأكد من تثبيت أقراص الجناح بحيث يكون الغشاء المحيط بالقدم موجهًا لأسفل نحو شريحة التغطية.
- بعد التثبيت، غطِّ العينات بـ 1.5H round (∅أغطية شرائح (12 مم).
- تأكد من استقرار حواف غطاء الشريحة فوق فواصل طلاء الأظافر التي وُضعت مسبقًا لتجنب سحق العينة.
- أغلق حواف غطاء الشريحة باستخدام طلاء الأظافر من جميع الجوانب لمنع تبخر وسط التثبيت.
- تُحفظ الأطباق في الظلام حتى مرحلة التصوير النهائية.
- اضبط درجة حرارة العينة لتتوافق مع درجة حرارة غرفة التحضين في المجهر، وذلك بوضع العينة في غرفة التحضين قبل التصوير المجهري بـ 30 دقيقة على الأقل.
- لمنع أي حركة للعينة، ثبت الطبق في حامل المجهر باستخدام لاصق حساس للضغط (مثل Blu Tack).
ملاحظة: تصف المصطلحات 2D STED و3D STED نوع تحسين الدقة، وليس ما إذا كان قد تم الحصول على صورة واحدة أو مجموعة صور متراصة (z-stack).12,17يعمل نظام STED ثنائي الأبعاد على تحسين الدقة الجانبية (x,y) فقط، عادةً لتصل إلى <50 نانومتر، بينما تظل الدقة المحورية (z) مشابهة لتلك الموجودة في المجهر البؤري (~600 نانومتر). وهي تقنية متينة نسبيًا وتتحمل عمومًا عدم التطابق التام في معامل الانكسار بين العينة ووسط الغمر للعدسة الشيئية.12يعزز تقنية STED ثلاثية الأبعاد (3D STED) كلاً من الدقة الجانبية والمحورية، مع تحسن قوي بشكل خاص على طول المحور z. ومن خلال تحسين الفلوروفور وظروف استنفاد STED، يمكن تحقيق دقة متساوية المناحي تقريبًا تتراوح بين 100-120 نانومتر في العينات البيولوجية.17,18ومع ذلك، فإن نمط الاستنفاد في مجهر STED ثلاثي الأبعاد حساس للغاية للزيغ الكروي. لذا، فإن نجاح التصوير يتطلب مطابقة دقيقة لمعامل الانكسار وضبطاً دقيقاً لحلقة التصحيح في الشيئية لتتناسب مع السمك الفعلي لغطاء الشريحة.
- متطلبات وإعدادات المجهر النانوي (Nanoscopy)
- قم بتشغيل جميع أجهزة المجهر المطلوبة وفقاً لإرشادات الشركة المصنعة.
- لا تشغل مفاتيح الليزر بعد.
- اضبط درجة حرارة غرفة التحضين في المجهر على 22–23 °C قبل التصوير بـ 1.5 ساعة على الأقل.
- ضع العينة في غرفة المجهر أيضاً، واتركها لتتكيف مع درجة الحرارة لمدة 30 دقيقة على الأقل.
- قم بتشغيل جهاز الكمبيوتر وافتح برنامج LAS X (الإصدار 4.9.0).
- تحديد التصوير بمجهر الاستنفاد الموجه بـ STED في نافذة الفتح، قم بتشغيل البرنامج
- عند تحميل البرنامج، قم بتدوير مفاتيح الأمان لكلا الليزرين عندما تضيء مصابيحهما باللون الأخضر.
- اذهب إلى اقتناء انقر فوق علامة التبويب واختَر عدسة STED المناسبة (HC PL APO 86x/1.20 W motCORR STED).
- انتقل إلى الـ التكوين انتقل إلى علامة التبويب وانقر فوق الزر الخاص بـ تكوين الليزر.
- انقر فوق جميع منزلقات الليزر لتشغيلها تشغيل.
- اذهب إلى الإعدادات انتقل إلى علامة التبويب وانقر فوق الزر الخاص بـ مجهر استنزاف الانبعاث المستحث (STED).
- انقر محاذاة الحزم.
- كرر محاذاة الحزم بعد مرور 30 دقيقة وساعتين من التصوير لضمان تحقيق المحاذاة المثلى؛ وكرر العملية بعد ذلك إذا لزم الأمر، على سبيل المثال عند ملاحظة انخفاض في الدقة أو زيادة في الخلفية.
- قم بمحاذاة طوق التصحيح (الميكانيكي) للعينة مع سمك غطاء الشريحة باستخدام إشارة الانعكاس لسطح غطاء الشريحة:
- انتقل إلى الـ احصل على انقر على علامة التبويب وابدأ في تعيين قيمة motCORR.
- أنشئ قناة جديدة لفلورة البروتين الفلوري الأخضر (GFP) في بؤري مشترك الوضع والتركيز على خلايا العينة.
- انقر على الـ بث مباشر الزر ونقل العينة إلى موضع لا توجد به عينة.
- أوقف التصوير الحي.
- تأكد من استخدام كاشف HyDS فقط لهذه القناة.
- قم بضبط الـ مرشح إيقاف النطاق (Notch filter) تهيئة لـ انعكاس.
- انقر فوق توجيه الزر واختيار توجيه xzy.
- قَلِّل سرعة التصوير الحي السريع إلى 100 هرتز إذا بدت العينة غير مستقرة أو أظهرت حركة على المحور z.
- ابدأ التصوير الحي بالنقر على البث المباشر السريع زر
- حدد موقع غطاء الشريحة الخاص بالعينة، والذي سيظهر على شكل خط
- اضبط قيمة motCORR حتى تصبح إشارة هذا الخط حادة وضيقة قدر الإمكان
ملاحظة: عند استخدام غطاء شريحة بسمك 1.5H، تكون القيمة عادةً في نطاق 48-56%. - ابدأ الآن بتحديد القنوات المستخدمة للتصوير في الـ استحوذ جدول
- يرجى الرجوع إلى الجدول ١ بالنسبة لإعدادات الكشف عن Alexa Fluor 594 و STAR635P في وضع STED.
- التصوير
- حدد منطقة التصوير عبر العدسات العينية للمجهر.
- أدر العينة بعناية لمحاذاة حدود الـ DV رأسيًا (الشكل 2).
- أغلق شاتر المجهر وانتقل إلى التصوير البؤري (confocal imaging)، مع تشغيل المجهر عبر الكمبيوتر.
- انقر بث مباشر سريع الزر، وضبط التركيز، والتحقق من توجيه حدود الـ DV.
- إيقاف التصوير الحي.
- (اختياري) التقط صورة عامة في اتجاه xyz في وضع المجهر البؤري (اضبط ليزر STED على 0% في كلتا القناتين) للرجوع إليها لاحقاً في هذه المرحلة. قم بتشغيل ليزر STED بعد التقاط الصورة العامة.
- حدد اتجاه xzy واضبط الخط الظاهر على المنطقة الدقيقة للتصوير المتعامد.
- انقر على الـ بث مباشر سريع الزر وضبط التركيز إذا لزم الأمر.
- اضبط الموضع السيني (x) للعينة باستخدام العجلة الزيدتية (z-Wheel) في المجهر.
- تأكد من تشغيل ليزرات STED لكلتا القناتين ومن صحة جميع الإعدادات.
- انقر بدء التجربة.
- تتراوح شدة كل بكسل (الكاشف في وضع عد الفوتونات) بين 50 و300 فوتون مكتشف؛ ويعتمد ذلك أيضاً على قدرة الليزر، وزمن مكوث البكسل، وعدد تجميعات الخطوط المطبقة. في حال توفر وحدة قياسات زمن العمر الفلوري (FLIM) (Falcon)، تحقق من أن عدد الفوتونات المكتشفة أقل من فوتون واحد لكل نبضة ليزر.
- اضبط القيم حسبما تقتضيه الحاجة لكل عينة على حدة.
- التحديات التي تواجه مجهرية STED النانوية
- لتصوير منطقة مورفولوجية محددة باستخدام مجهر STED ثلاثي الأبعاد، قم بتدوير العينة وتوجيهها في المجهر لمحاذاة النسيج بدقة مع المحور المطلوب قبل الانتقال من عرض XY إلى عرض XZ. يمكن تحقيق هذه المرونة من خلال التثبيت على أطباق مستديرة يمكن تحريكها وفقاً للمتطلبات التجريبية (الشكل 2).
- أثناء المسح في المستوى xz، تتحرك العينة مادياً على طول المحور z، وهو ما أدى في البداية إلى تحرك الطبق قليلاً في المستوى xy نتيجة التذبذبات على طول المحور الرأسي. ولمنع أي حركة للأطباق، قم بتثبيت الطبق على حامل عينات المجهر باستخدام معجون تثبيت (Blu Tack)؛ إذ يسمح ذلك بالدوران الحر مع منع الحركة الرأسية (المحور z).
- ولمنع تبخر وسط التثبيت وجفاف النسيج، تم سد أغطية الشرائح باستخدام طلاء الأظافر.
- لتجنب انزياح العينة الناتج عن فروق درجات الحرارة بين العينة والمجهر، ضع العينات في غرفة تحضين المجهر قبل التصوير بـ 30 دقيقة على الأقل، واتركها لتتأقلم مع درجة حرارة المجهر.16.
- لاختيار الجسم المضاد الثانوي، اتبع الخطوات أدناه:
- تعتبر مجموعة واسعة من الفلوروفورات مناسبة للتصوير بتقنية STED، ولكن مجموعة فرعية منها فقط تجمع بين الخصائص الفيزيائية الضوئية والطيفية المواتية للتصوير ثنائي اللون بتقنية STED باستخدام ليزر استنزاف واحد (775 نانومتر في هذه الحالة). استخدم طولاً موجياً واحداً لاستنزاف STED لكلا الفلوروفورين لضمان المحاذاة اللونية الجوهرية وإلغاء الحاجة إلى تصحيح الإزاحة اللونية من خلال تحديد كلتا القناتين بنفس نمط استنزاف STED.
- تشمل أزواج الفلوروفور الشائعة STAR RED/STAR635P، وATTO 647N/ATTO 643، مدمجة مع Alexa Fluor 594، أو STAR 580، أو STAR ORANGE.18,19استُخدم هنا المزيج المعتمد على نطاق واسع من Alexa Fluor 594 و STAR635P. وبالرغم من وجود تداخل جزئي في أطياف انبعاثهما، يتم الحصول على الفلوروفورات بنمط المسح سطرًا بسطر (line-by-line mode) مع استخدام نافذة كشف ضيقة لـ Alexa Fluor 594 لتقليل التداخل (انظر الجدول 1وبما أن هذا يقلل من كفاءة الكشف عن Alexa Fluor 594، فقم بتعيين التلوين المناعي الأكثر سطوعاً لهذه القناة.
النتائج
لتحديد ظروف التصوير المناسبة لتقنية نانوسكوب STED ثلاثية الأبعاد في أقراص التخيل الجناحية، أجرينا أولاً صبغاً مناعياً فلورياً قياسياً لبروتين Wg والبروتين المرتبط بالغشاء القمي Dlp. تم الكشف عن Wg باستخدام Alexa Fluor 594، بينما تم وسم Dlp بـ STAR635P، وهما فلوروفوران متوافقان مع نانوسكوب STED (الشكل 3). تم الحصول على الصور بدون استنفاد STED للحصول على صور بجودة مجهر كونفوكال، ومع استنفاد STED للتصوير فائق الدقة باستخدام الإعدادات الموضحة في الخطوة 2.3 (الشكل 3).
أظهرت المقارنة المباشرة لنفس المنطقة النسيجية التي تم تصويرها تحت ظروف المجهر البؤري (confocal) ومجهر STED كمقاطع xz الزيادة الكبيرة في الدقة المكانية التي يوفرها مجهر النانوسكوب 3D STED (الشكل 3A–D′). فقد تحولت البنى التي ظهرت كإشارات مستطيلة في الصور البؤرية (الشكل 3A,A′، والشكل C,C′) إلى نقاط متعددة ومتميزة في وضع STED (الشكل 3B,B′، والشكل D,D′). لوحظ هذا التحسن في كل من قناتي Alexa Fluor 594 وSTAR635P، واستُخدم لتحسين معايير الصبغ والتصوير لتحقيق أعلى جودة ممكنة للإشارة ودقة متساوية المناحي (isotropic resolution) في نسيج القرص الجناحي السليم.
بعد ذلك، دمجنا اختبار امتصاص Wg15 مع التثبيط الدوائي لاستقصاء انتقال Wg عند الغشاء القمي وإعادة تدويره من خلال الالتقام الخلوي المعتمد على الكلاثرين. وقد استخدمنا سلالة ذباب Wg::GFP موسومة داخلياً20، مما أتاح الكشف عن Wg::GFP خارج الخلية باستخدام جسم مضاد لـ GFP، مع الحفاظ على التوافق مع أجسام مضادة إضافية مشتقة من الفئران.
تمت معالجة الأقراص التخيلية للجناح بـ Dynasore 2-24، وهو مثبط للدينامين يستهدف عملية الالتقام الخلوي المعتمدة على الكلاثرين والدينامين21,22، ثم خضعت لاحقاً لاختبار امتصاص Wg. تم وسم Wg::GFP خارج الخلية باستخدام جسم مضاد لـ GFP لمراقبة عملية الإدخال الخلوي، بينما استُخدم صبغ anti-Dlg1 لتصور مورفولوجيا الأنسجة. تم الكشف عن Wg باستخدام Alexa Fluor 594 وتم تصويره بوضع STED، بينما وُسم Dlg1 بـ STAR635P (الشكل 4). أظهرت الأقراص الضابطة المعالجة بـ DMSO إدخالاً تدريجياً لـ Wg::GFP طوال اختبار الامتصاص، حيث تم الكشف عن إشارة الالتقام الخلوي حتى عمق يصل إلى 14 µm تقريباً (الشكل 4A,A′). كُررت التجربة بشكل مستقل مرتين وفقاً للبروتوكولات الموضحة في القسمين 1 و2 (الشكل 4B,C). في التكرار الأول، أدت المعالجة بـ 5 µM من Dynasore2-24 إلى إلغاء امتصاص Wg تماماً (n = 4؛ الشكل 4B,B′). أما في التكرار الثاني، فقد انخفض إدخال Wg الخلوي ولكن لم يتم التخلص منه تماماً (n = 4؛ الشكل 4C,C′)، مع انخفاض أقصى عمق اختراق إلى 5 µm تقريباً.
يُلاحظ هذا التباين عادةً في تجارب التثبيط الدوائي، ويرجح أنه يعكس اختلافات في فعالية المثبط أو توقيت استخدامه. وقد يساهم التثبيط غير الكامل، أو محدودية نفاذ المثبط إلى الأنسجة، أو استعادة عملية الالتقام الخلوي أثناء المقايسة، أو التأخيرات الناتجة عن خطوات الغسل الحمضي والتثبيت، في بقاء جزء من عملية استدخال Wg. ومع ذلك، فقد أظهرت كلتا التجربتين باستمرار انخفاضاً ملحوظاً في امتصاص Wg وعمق النفاذ مقارنة بمجموعات التحكم التي استخدمت DMSO، مما يثبت نجاح تثبيط عملية الالتقام الخلوي. كما تؤكد هذه النتائج أن التوقيت الدقيق طوال البروتوكول يعد أمراً حاسماً لضمان الحصول على نتائج قابلة للتكرار.
لوحظ أحياناً وجود إشارة متبقية مرتبطة بالغشاء بعد عملية النزع الحمضي، ومن المرجح أنها تمثل جزيئات Wg::GFP التي كانت قد دخلت بالفعل في النقر الداخلية المبكرة، وبالتالي تعذر وصول الأجسام المضادة لإزالتها23,24,25.
تُثبت هذه التجارب مجتمعة أن الجمع بين مقايسة امتصاص Wg والتدخل الدوائي وتصوير النانو بتقنية STED ثلاثية الأبعاد يتيح تصور ديناميكيات نقل الغشاء في أقراص الجناح الخيالية السليمة. كما تحدد هذه التجارب المعايير الرئيسية للتنفيذ الناجح للبروتوكول، بما في ذلك مجموعات الفلوروفور والأجسام المضادة المناسبة، والمعالجة المحسنة بالمثبطات، والتوقيت الدقيق لمقايسة الامتصاص، وتثبيت العينة فوراً قبل التصوير.
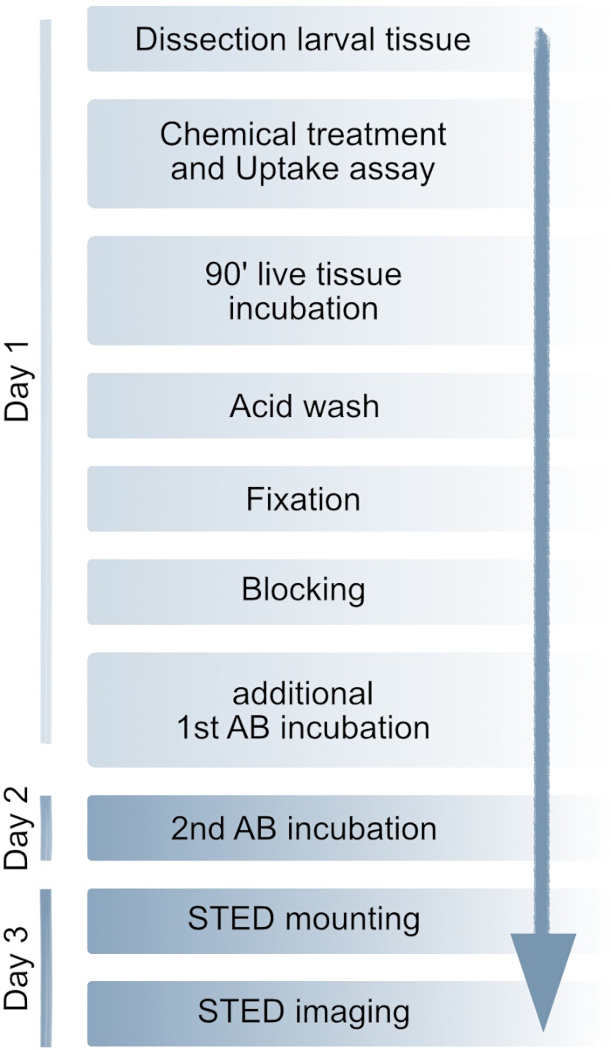
الشكل 1: سير عمل الطريقة. يمكن إتمام البروتوكول الكامل في غضون 3 أيام. واختياريًا، يمكن إجراء تحضين الأجسام المضادة الثانوية في اليوم نفسه. تتوفر الإجراءات التفصيلية في قسم البروتوكول. AB: جسم مضاد. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
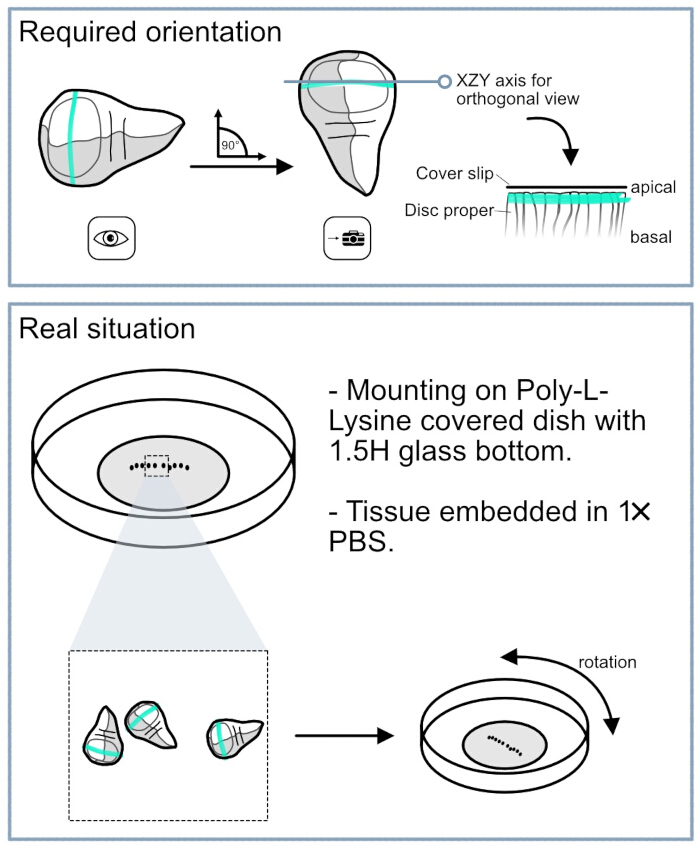
الشكل 2: التحديات في تثبيت أقراص أجنحة Drosophila لتصوير 3D STED. في اللوحة العلوية، يوضح التوجيه المطلوب لأقراص الأجنحة. ولتحليل الخلايا المفرزة لـ Wg، من الضروري أن تكون حدود DV محاذية تماماً بشكل رأسي في عرض العدسة العينية. هذا المحاذاة تسمح بتدوير عرض الكاميرا إلى المستوى المتعامد، مما يتيح الاستهداف الدقيق لمجموعة الخلايا المطلوبة. وتوضح اللوحة السفلية الإعداد العملي المستخدم للتعامل مع أقراص الأجنحة أثناء التصوير. ثُبتت أقراص الأجنحة في أطباق بتري مستديرة ذات قاعدة من غطاء شريحة زجاجية بسمك 1.5H. طُلي سطح الغطاء بـ poly-L-lysine لتسهيل التصاق النسيج. ويسمح تصميم الطبق الدائري بالتدوير داخل حامل المجهر، مما يتيح المحاذاة الرأسية الدقيقة لحدود DV كما هو مطلوب للتصوير. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
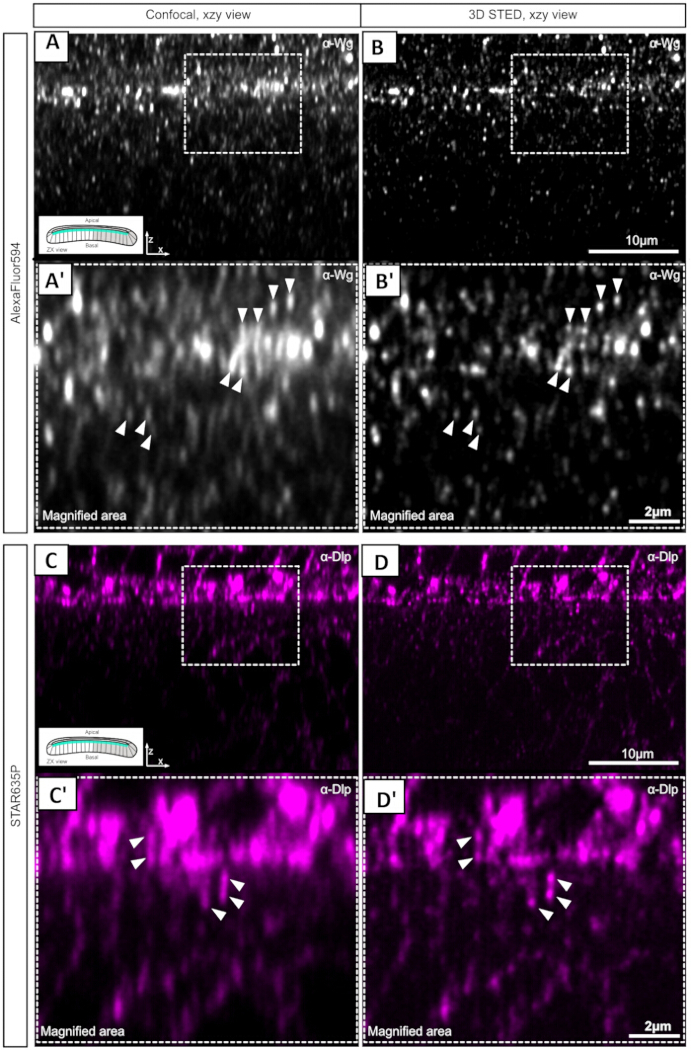
الشكل 3: مقارنة بين التصوير المجهري البؤري (confocal) وتصوير 3D STED عند الحدود الظهرية البطنية (DV boundary) لأقراص أجنحة Drosophila. (A) صورة مجهرية بؤرية للخلايا المفرزة لبروتين Wg عند الحدود الظهرية البطنية موضحة في المستوى XZ. تم الكشف عن صبغ Anti-Wg باستخدام Alexa Fluor 594. (A’) عرض مكبر للمنطقة المحددة يظهر إشارات مستطيلة (رؤوس الأسهم) في منطقة الغشاء القمي. (B,B’) المنطقة نفسها مصورة بواسطة تقنية 3D STED nanoscopy. تظهر إشارة Alexa Fluor 594. وبالمقارنة مع التصوير البؤري، تقوم تقنية 3D STED بتحليل الإشارات المستطيلة إلى نقاط متميزة وتكشف عن إشارات فردية متعددة (رؤوس الأسهم). (C) صورة مجهرية بؤرية لقناة STAR635P من العينة نفسها الموضحة في A و B. كمثال، تم الكشف عن Dlp باستخدام جسم مضاد ثانوي مقترن بـ STAR635P، مما يبرز الغشاء القمي. (C’) عرض مكبر يظهر إشارات مستطيلة في الصورة البؤرية. (D) صورة 3D STED للمنطقة نفسها الموضحة في C. (D’) عرض مكبر يوضح أن الإشارات العريضة والمستطيلة التي لوحظت بواسطة المجهر البؤري قد تم تحليلها إلى نقاط متميزة بواسطة تصوير 3D STED. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
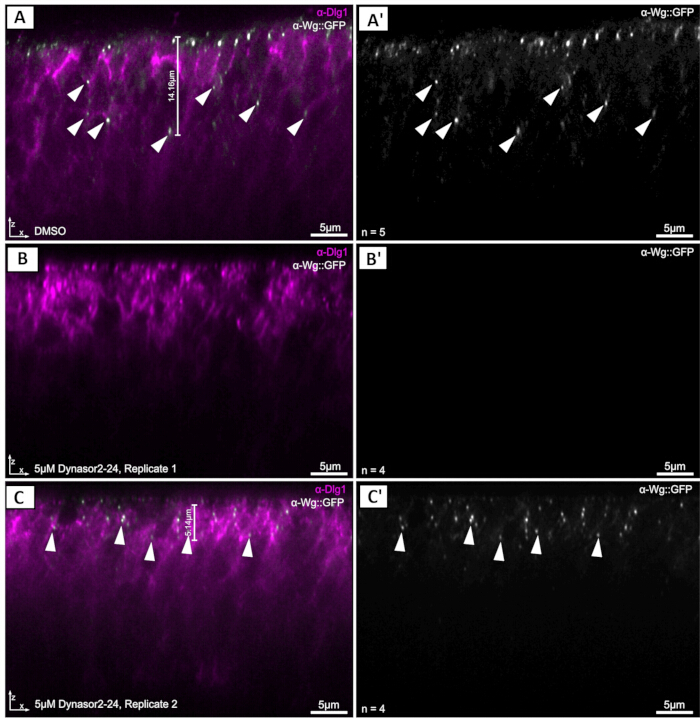
الشكل 4: دمج التثبيط الكيميائي مع مقايسة امتصاص Wg في أقراص تخيل الجناح لـ Drosophila التي تم تصويرها بواسطة 3D STED. (A,A’) قرص تحكم تم معالجته بـ DMSO (العدد = 5). تم وسم Wg::GFP خارج الخلوي (باللون الرمادي) بكفاءة، وتم الكشف عن Wg::GFP الممتص داخل الخلايا (رؤوس الأسهم). يحدد Dlg1 (باللون الأرجواني) مورفولوجيا الأنسجة والمنطقة القمية للقرص نفسه. (B,B’) عينة ممثلة من المكررة 1 تمت معالجتها بـ 5 µM من Dynasore2-24 لتثبيط عملية الالتقام الخلوي المعتمدة على الكلاثرين والدينامين (العدد = 4). تلاشى إشارة Wg::GFP بعد مقايسة الامتصاص. (C,C’) عينة ممثلة من المكررة 2 تمت معالجتها بـ 5 µM من Dynasore2-24 (العدد = 4). تظل إشارة Wg::GFP المتبقية قابلة للكشف بالقرب من السطح القمي (رؤوس الأسهم)، ولكن الإشارة داخل الخلايا تقتصر على أول 5 µm تقريباً من النسيج، مقارنة بحوالي 14 µm في ضوابط DMSO (أشرطة القياس في A و C). يعمل Dlg1 (باللون الأرجواني) كمرجع مورفولوجي. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| الإعدادات | قناة Alexa Fluor 594 | قناة STAR635P |
| الهدف | 86x/1.2 HC PL APO CS2 (ماء) | 86x/1.2 HC PL APO CS2 (ماء) |
| حجم البكسل | 37 نانومتر × 37 نانومتر | 37 نانومتر × ٣٧ نانومتر |
| تكبير | 1.2 | 1.2 |
| نافذة الكشف | 3072 × ١٥٣٦ بكسل | 3072 × ١٥٣٦ بكسل |
| متوسط الخط | 1 | 1 |
| تراكم الخطوط | 16 | 16 |
| سرعة المسح | 100–200 | 100–200 |
| حجم الثقب الضيق | 70 μm | 70 μm |
| خط ليزر الإثارة | 580 نانومتر | 638 نانومتر |
| شدة خط ليزر الإثارة | 4%–10% (حسب العينة) | 8%–10% (يعتمد على العينة) |
| كاشف | HyD X2، 595-625 نانومتر | HyD X4، 650-740 نانومتر |
| ليزر الاستثارة لبوابة تاو (Tau gating) | 0.5–8 نانو ثانية | 0.5–8 نانو ثانية |
| خط ليزر الاستنفاد | ٧٧٥ نانومتر | 775 نانومتر |
| قدرة ليزر الاستنفاد | 65-75% (تعتمد على العينة) | 65-75% (تعتمد على العينة) |
| المعالجة البعدية للصور القائمة على العمر الزمني (τ- مجهر استنفاد الانبعاث المستحث (STED) | τ-القوة: 10 | τ-القوة: 10 |
| τ- كبت الخلفية: نشط | τ-كبت الخلفية: نشط | |
| تنعيم: 0 | تنعيم: 0 |
الجدول 1: إعدادات المجهر التفصيلية للفلوروفورات باستخدام مجهر STELLARIS SP8. لقد قدمنا الإعدادات التي استخدمناها للفلوروفورات Alexa Fluor 594 و Star635P.
المناقشة
لا يزال تصوير حركة نقل الغشاء وديناميكيات الإشارات داخل الأنسجة السليمة يشكل تحديًا تقنيًا، لا سيما في الخلايا الظهارية عالية الاستقطاب مثل تلك الموجودة في القرص التخيلي لجناح ذبابة Drosophila. فالمورفولوجيا العمودية الضيقة لهذه الخلايا تحد من المعلومات التي يمكن الحصول عليها باستخدام المجهر البؤري التقليدي، خاصة عند تحليل تموضع البروتين على طول المحور القمي القاعدي. في هذا البروتوكول، عالجنا هذه القيود من خلال الجمع بين النانوسكوب 3D STED11,12 واختبارات الامتصاص القائمة على الأجسام المضادة والتدخلات الدوائية. تتيح هذه النهج مجتمعة تصوير أحداث نقل البروتين الديناميكية داخل بيئة أنسجتها الأصلية بدقة مكانية لا يمكن تحقيقها باستخدام التصوير البؤري القياسي.
تتمثل إحدى المزايا الرئيسية لسير العمل في استخدام تقنية المجهر النانوي STED ثلاثي الأبعاد لاستقصاء العمليات المرتبطة بالغشاء في الأنسجة الكاملة. وقد أظهرت المقارنة المباشرة بين التصوير المجهري البؤري (confocal) وتصوير STED أن الإشارات المستطيلة التي لوحظت بواسطة المجهر البؤري يمكن تحليلها إلى نقاط متميزة باستخدام تصوير STED ثلاثي الأبعاد (الشكل 3)، مما أدى إلى تحسين تصور البروتينات عند الغشاء القمي بشكل كبير. وتعد هذه الدقة المتزايدة ذات قيمة خاصة لتحليل مسارات الإفراز، والالتقام الخلوي، والنقل داخل الخلايا، حيث يعد التحديد الدقيق لمواقع الحويصلات الفردية والمعقدات البروتينية المرتبطة بالغشاء أمرًا ضروريًا. علاوة على ذلك، فإن القدرة على الحصول على مناظر متعامدة تتيح فحص تنظيم البروتينات وعمليات نقلها على طول المحور القمي-القاعدي للخلايا الظهارية.
يؤدي دمج الاضطرابات الفارماكولوجية مع مقايسة الامتصاص إلى توسيع الإمكانات التجريبية لهذه الطريقة بشكل أكبر. فبينما تقوم مقايسة الامتصاص بتمييز البروتينات التي خضعت للإفراز ثم إعادة الامتصاص اللاحقة ضمن نافذة زمنية محددة، تتيح المعالجات الفارماكولوجية إحداث اضطراب في مسارات نقل محددة. وبناءً على ذلك، يوفر الجمع بين هذين النهجين رؤية مباشرة حول كيفية تأثير العمليات الخلوية على ديناميكيات نقل البروتين in vivo. وكما تم توضيحه، فإن تصور Wg::GFP الممتص تحت تثبيط الالتقام الخلوي المعتمد على الكلاثرين أدى إلى فقدان الإشارة الممتصة للبروتين المميّز عند الغشاء القمي و/أو انخفاض في إشارة الامتصاص داخل الخلايا، مما يوضح كيف يمكن استخدام سير العمل هذا لاستقصاء آليات النقل ضمن سياقها النسيجي الفسيولوجي. وبشكل أوسع، يكمل هذا النهج الاستراتيجيات الجينية التقليدية ويعزز من فائدة Drosophila كنظام نموذجي للدراسات الميكانيكية لمسارات التأشير.
هناك عدة عوامل حاسمة للتنفيذ الناجح لهذا البروتوكول. أولاً، يعد اختيار الأجسام المضادة الأولية أمراً بالغ الأهمية، حيث يتطلب الكشف الموثوق عن الإشارة وجود وسم قوي ومحدد. ومع ذلك، لا تزال محدودية توافر الأجسام المضادة المعتمدة ضد بروتينات Drosophila الداخلية تشكل عائقاً رئيسياً. في هذا البروتوكول، استلزم ذلك استخدام سلالة Wg::GFP موسومة داخلياً، نظراً لأن العديد من الأجسام المضادة الشائعة لـ Drosophila يتم إنتاجها في الفئران، مما يحد من عملية الوسم المناعي المتعدد. وعلى الرغم من أن الأصباغ الفلورية يمكن أن توفر بديلاً لوسم التراكيب الخلوية مثل الأغشية أو الميتوكوندريا أو العضيات الأخرى، إلا أن معظم الأصباغ المتاحة تجارياً قد تم تحسينها للخلايا المستزرعة ويصعب تطبيقها بكفاءة على أنسجة Drosophila السليمة.
بالإضافة إلى ذلك، يجب تقييم الأجسام المضادة الثانوية والفلوروفورات بعناية للتأكد من توافقها مع المجهر النانوي STED، حيث لا توفر جميع الفلوروفورات شدة إشارة أو استقراراً ضوئياً أو كفاءة استنفاد كافية في ظروف تصوير STED19,26. وتؤكد النتائج المعروضة هنا أهمية تحضير العينات والتعامل مع الأنسجة. وبالمثل، يجب تحسين العلاجات الدوائية بعناية، لأن تركيزات الدواء المفرطة يمكن أن تضعف سلامة الأنسجة وتؤدي إلى ظهور شوائب تصويرية تحجب الإشارات البيولوجية. كما يعد التوجيه الدقيق للأنسجة أمراً بالغ الأهمية، حيث يتطلب الحصول على مناظر متعامدة وتصوير مجموعات الخلايا المطلوبة بشكل قابل للتكرار محاذاة دقيقة للحد الظهري البطني (الشكل 2).
يمكن إدخال عدة تعديلات لتكييف سير العمل مع المتطلبات التجريبية المختلفة: حيث يمكن ضبط مدة مقايسة الامتصاص (Uptake assay) لتحقيق التوازن بين الوسم البروتيني الكافي والحفاظ على سلامة النسيج. وبالمثل، قد تتطلب تركيزات المثبطات معايرة بناءً على نوع النسيج، أو المرحلة التطورية، أو مسار التأشير قيد الدراسة. كما يتوافق البروتوكول مع مجموعة متنوعة من طرق الصبغ، بما في ذلك التألق المناعي القياسي، والتألق المناعي خارج الخلية، واستراتيجيات الوسم القائمة على الفلوروفورات، شريطة أن تكون الفلوروفورات المختارة مناسبة لمجهر STED النانوي. وبالرغم من أن سير العمل الحالي يركز على التصوير ثنائي اللون، إلا أنه يمكن إضافة فلوروفورات وتكوينات تصوير إضافية لتوسيع نطاق تطبيقاته بشكل أكبر.
بينما تم تطوير هذا البروتوكول باستخدام أقراص التخيل لجناح ذبابة Drosophila ومسار تأشير Wg/Wnt كنظام نموذجي، إلا أن هذا النهج لا يقتصر على هذه التطبيقات فقط. إذ يمكن تكييف سير العمل بسهولة مع أنسجة Drosophila الأخرى، ومن المرجح أن يكون قابلاً للنقل إلى نماذج حشرات أخرى ذات أبعاد أنسجة وخصائص بصرية مماثلة. وبشكل عام، يوفر الجمع بين مقايسات الامتصاص (Uptake assays)، والاضطرابات الفارماكولوجية، ومجهر STED النانوي ثلاثي الأبعاد إطاراً متعدد الاستخدامات لاستقصاء تنظيم الغشاء، ونقل البروتين، والإفراز، وديناميكيات التأشير in vivo. ومن المرجح أن تكون هذه القدرة قيمة ليس فقط للدراسات الأساسية لمسارات التأشير التنموية، ولكن أيضاً للأبحاث الطبية الحيوية التي تهدف إلى فهم عيوب النقل المرتبطة بالأمراض. ومن خلال تمكين التصوير المباشر لمجموعات البروتينات الديناميكية بدقة تحت خلوية داخل الأنسجة السليمة، توفر هذه الطريقة منصة قوية لدراسة الآليات الخلوية التي تنظم التأشير في الأنظمة البيولوجية المعقدة.
الإفصاحات
يعلن المؤلفون عن عدم وجود تضارب في المصالح.
شكر وتقدير
يتلقى M.B. وM.H. دعماً من مركز الأبحاث التعاوني التابع لـ Deutsche Forschungsgemeinschaft CRC/SFB1324 (مشروع رقم 331351713) حول آليات ووظائف إشارات Wnt. نود أن نشكر مرفق مجهر الضوء المركزي (LMCF) في DKFZ على خبراتهم ودعمهم.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| أنابيب تفاعل PCR سعة 0.2 مل | Biozym | 711068 | |
| أنبوب تفاعل سعة 1.5 ملل | Sarstedt | 72.706.700 | |
| قاع غطاء شريحة زجاجي بسمك 1.5 ساعة μ-طبق، 35 مم | إيبيدي (Ibidi) | #81158 | |
| غطاءات شرائح مستديرة (12 مم) بسمك 1.5 ساعة | مارينفيلد | يرجى تقديم النص المراد ترجمته. | |
| لوحة صبغ زجاجية ذات 12 بئراً | مارينفيلد | CET6.20 | |
| فورمالديهيد بتركيز 37% | Merck | F8775 | |
| مضاد dlg1 | DSHB | 4F3 | |
| مضاد لبروتين DLP | DSHB | 13G8 | |
| مضاد لبروتين GFP | Invitrogen | A11122 | |
| Alexa Fluor 594 المضاد للفأر | Invitrogen | A21201 | |
| anti-mouse STAR635P | أبيريور | ST635P-1001 | |
| مضاد للأرنب Alexa Fluor 594 | Invitrogen | A11012 | |
| مضاد للأرنب STAR635P | أبيريور | ST635P-1002 | |
| مضاد-Wg | بنك السلالات ذات الميزات المحددة (DSHB) | 4D4 | |
| Blu Tack | Bostik | 30811745 | لاصق حساس للضغط |
| ثنائي ميثيل سلفوكسيد (DMSO) | VWR | SIAL472301 | |
| ملقط Dumont 5 | دوماونت | رقم ٥ | |
| Dynasor2-24 | الكروماتوغرافيا الكهربائية المجهرية | HY-13863 | |
| مصل جنين البقر | Sigma-Aldrich | F7524 | |
| جلايسين | جيربو | 10.231.000 | |
| مجهر Leica Stellaris 8 STED Falcon | Leica Microsystems | لم يتوفر نص للترجمة. يرجى تزويدي بالنص المصدر باللغة الإنجليزية لبدء عملية الترجمة العلمية. | |
| طلاء الأظافر | جوهر | غير متاح | |
| مصل ماعز طبيعي | إشارات الخلايا | 5425S | |
| الهدف: عدسة شيئية HC PL APO 86x/1.20 W motCORR STED البيضاء | Leica Microsystems | غير متاح | |
| أقراص المحلول الملحي المنظم بالفوسفات (PBS) | تقنيات الحياة | 18912014 | |
| فوتو فلو (Photo Flo) | Kodak | لا ينطبق | |
| بولي-إل-لايسين | Sigma-Aldrich | P1524 | |
| وسط شنايدر لتربية الحشرات | سيجما | S0146 | |
| Triton-X100 | Sigma-Aldrich | T9284 |
المراجع
- Giansanti MG, Frappaolo A, Piergentili R. Drosophila melanogaster: How and why it became a model organism. Int J Mol Sci. 2025;26(15):7485.
- Tolwinski NS. Introduction: Drosophila—A model system for developmental biology. J Dev Biol. 2017;5(3):9.
- Perrimon N, Pitsouli C, Shilo BZ. Signaling mechanisms controlling cell fate and embryonic patterning. Cold Spring Harb Perspect Biol. 2012;4(8):a005975.
- Grobe K, Guerrero I. Dally-like is unlike Dally in assisting Wingless spread. Dev Cell. 2020;54(5):572-573.
- Han C, Yan D, Belenkaya TY, Lin X. Drosophila glypicans Dally and Dally-like shape the extracellular Wingless morphogen gradient in the wing disc. Development. 2005;132(4):667-679.
- Khare N, Baumgartner S. Dally-like protein, a new Drosophila glypican with expression overlapping with wingless. Mech Dev. 2000;99(1):199-202.
- McGough IJ, et al. Glypicans shield the Wnt lipid moiety to enable signalling at a distance. Nature. 2020;585(7823):85-90.
- Beckett K, et al. Drosophila S2 cells secrete wingless on exosome-like vesicles but the wingless gradient forms independently of exosomes. Traffic. 2013;14(1):82-96.
- Gross JC. Extracellular WNTs: Trafficking, exosomes, and ligand–receptor interaction. Handb Exp Pharmacol. 2021;269:29-43.
- Gross JC, Chaudhary V, Bartscherer K, Boutros M. Active Wnt proteins are secreted on exosomes. Nat Cell Biol. 2012;14(10):1036-1045.
- Eggeling C, Willig KI, Sahl SJ, Hell SW. Lens-based fluorescence nanoscopy. Q Rev Biophys. 2015;48(2):178-243.
- Sahl SJ, Hell SW, Jakobs S. Fluorescence nanoscopy in cell biology. Nat Rev Mol Cell Biol. 2017;18(11):685-701.
- Wu Z, Xu X, Xi P. Stimulated emission depletion microscopy for biological imaging in four dimensions: A review. Microsc Res Tech. 2021;84(9):1947-1958.
- Jiang N, et al. Superresolution imaging of Drosophila tissues using expansion microscopy. Mol Biol Cell. 2018;29(12):1413-1421.
- Witte L, Linnemannstöns K, Honemann-Capito M, Gross JC. Visualization and quantitation of Wg trafficking in the Drosophila wing imaginal epithelium. Bio Protoc. 2021;11(11):e4040.
- Zimmermann T. Setting up a light microscopy core facility: Facility design. J Microsc. 2024;294(3):255-267.
- Hell SW. Microscopy and its focal switch. Nat Methods. 2009;6(1):24-32.
- Bückers J, et al. Simultaneous multi-lifetime multi-color STED imaging for colocalization analyses. Opt Express. 2011;19(4):3130-3143.
- Jeong S, Widengren J, Lee JC. Fluorescent probes for STED optical nanoscopy. Nanomaterials (Basel). 2022;12(1):21.
- Port F, Chen HM, Lee T, Bullock SL. Optimized CRISPR/Cas tools for efficient germline and somatic genome engineering in Drosophila. Proc Natl Acad Sci U S A. 2014;111(29):E2967-E2976.
- Preta G, Cronin JG, Sheldon IM. Dynasore - not just a dynamin inhibitor. Cell Commun Signal. 2015;13(1):24.
- Yamada H, et al. Dynasore, a dynamin inhibitor, suppresses lamellipodia formation and cancer cell invasion by destabilizing actin filaments. Biochem Biophys Res Commun. 2009;390(4):1142-1148.
- Brunt L, Scholpp S. The function of endocytosis in Wnt signaling. Cell Mol Life Sci. 2018;75(5):785-795.
- Fabrowski P, et al. Tubular endocytosis drives remodelling of the apical surface during epithelial morphogenesis in Drosophila. Nat Commun. 2013;4(1):2244.
- Fischer JA, Eun SH, Doolan BT. Endocytosis, endosome trafficking, and the regulation of Drosophila development. Annu Rev Cell Dev Biol. 2006;22:181-206.
- Klar TA, et al. Fluorescence microscopy with diffraction resolution barrier broken by stimulated emission. Proc Natl Acad Sci U S A. 2000;97(15):8206-8210.