تهدف هذه الدراسة إلى استكشاف الآليات الجزيئية المحتملة الكامنة وراء التأثيرات المضادة للأكسدة والمضادة للالتهابات لمادة الأميغدالين (amygdalin) في نموذج الثعلبة البقعية لدى فئران C3H/HeJ وفي نموذج إصابة الخلايا الميلانية البشرية الأولية في البشرة والمستحثة بواسطة H2O2.
مقالة بحثية
تنظيم الأميغدالين لمسار إشارات FOXO3a لتثبيط الإجهاد التأكسدي وتحسين الثعلبة البقعية في الفئران
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
تهدف هذه الورقة البحثية إلى استكشاف آلية التأثير العلاجي لمادة الأميغدالين (AMG) على الثعلبة البقعية (AA). استُخدم صبغ الهيماتوكسيلين والإيوزين لاستقصاء السُمية الكبدية والكلوية لمركب AMG. وبعد إنشاء نموذج AA في فئران من سلالة C3H/HeJ وH2O2-خلايا ميلانينية بشرية أولية تالفة (HPEMs)، وعقب التدخل باستخدام AMG، تم رصد محتوى أنواع الأكسجين التفاعلية (ROS) ومستويات بروتين وجين forkhead box O3A (FOXO3a). ومجموعات تحليل كيميائية حيوية أو المقايسة المناعية المرتبطة بالإنزيم استُخدمت للكشف عن محتويات سوبر أكسيد ديسميوتاز (SOD)، والكاتالاز (CAT)، وغلوتاثيون بيروكسيداز 4 (GPX-4)، والمالون ديالدهيد (MDA)، وإنترلوكين-15 (IL-15)، وإنترفيرون غاما (IFN-γ)، وإنترلوكين-6 أُجري تحليل لطخة ويسترن (Western blot) لتقييم مستويات MHC I، وIL-15، وFOXO3a، وSOD، وCAT، وGPX-4، وIFN-6.γ، وIL-6، وIL-15. أُجري تحليل الترسيب المناعي للكروماتين متبوعاً بتفاعل البوليميراز المتسلسل (ChIP-PCR) لتقييم إثراء AMG عند محفزات SOD وCAT وGPX-4 في FOXO3a. وفي الوقت ذاته، تم استقصاء أنواع الأكسجين التفاعلية (ROS)، والموت الخلوي المبرمج، ومستويات البروتين والجينات لكل من FOXO3a وSOD وCAT وGPX-4 في الخلايا الظهارية الرئوية البشرية (HPEMs) ذات التعبير المنخفض عن FOXO3a. لا يمتلك AMG سمية محتملة في الكبد أو الكلى، ويمكنه تقليل تعبير بروتينات MHC I وIL-15 في الجلد، بالإضافة إلى تقليل مستوى IL-15 في المصل. كما يمكن لـ AMG تعزيز تعبير بروتين وجين FOXO3a في الجلد، وكذلك رفع مستويات SOD وCAT وGPX-4، مع تقليل مستويات ROS وMDA. ويمكن لـ AMG تثبيط MHC I وIFN-γوIL-6، وIL-15، وMDA، والموت الخلوي المبرمج، وإنتاج أنواع الأكسجين التفاعلية (ROS) في الخلايا الظهارية المبطنة للأنابيب الكلوية البشرية (HPEMs)، وزيادة محتويات SOD وCAT وGPX-4. ومن المهم أن AMG يمكنه زيادة تنظيم تعبير جينات وبروتينات FOXO3a وSOD وCAT وGPX-4، وإثراء FOXO3a عند محفزات SOD وCAT وGPX-4. تشير هذه البيانات إلى أن AMG يمكن أن يعزز تعبير FOXO3a ويثبط الإجهاد التأكسدي والاستجابات الالتهابية، مما يؤدي بالتالي إلى تحسين AA في فئران C3H/HeJ.
المقدمة
باعتبارها اضطراباً مناعياً ذاتياً يتميز بتساقط شعر مفاجئ وغير ندبي، تبلغ نسبة انتشار الثعلبة البقعية (AA) عالمياً حوالي 2–3%، ويوجد أكثر من 30 مليون مريض في الصين1. وتظهر البيانات الوبائية أن المرض يمكن أن يصيب الأفراد من جميع الفئات العمرية، ولكنه يظهر انتشاراً أعلى بين البالغين الشباب، حيث يعاني حوالي 60% من المرضى من الإصابة الأولى قبل سن 20 عاماً، مع نسبة متساوية تقريباً بين الذكور والإناث1,2. وعلى الصعيد العالمي، يبلغ معدل الإصابة السنوي بـ AA حوالي 0.2–0.3%، حيث تمثل الثعلبة البقعية أحادية الموقع 40%، والثعلبة البقعية متعددة المواقع 35%، والصلع الكلي 5%، والثعلبة الشاملة 2%3,4,5. ومن حيث المضاعفات، يعاني حوالي 30% من المرضى من انخسافات في الأظافر، وتضاريس طولية، وأضرار أخرى، كما يتجاوز معدل المراضة المشتركة مع أمراض مناعية ذاتية مثل اضطرابات الغدة الدرقية والبهاق المستويات الملحوظة لدى عامة الناس6,7. ومن منظور الضرر، لا تؤثر AA على المظهر فحسب، بل إنها عرضة أيضاً للتسبب في مشاكل نفسية مثل الاكتئاب والقلق، حيث يعاني حوالي 70% من المرضى الجدد من أحداث ضغط نفسي شديدة خلال 3 أشهر قبل ظهور المرض8,9. وفي حال تركها دون علاج لفترة طويلة، قد يتطور حال المرضى إلى الصلع الكلي أو الثعلبة الشاملة، مما يؤثر بشدة على وظائفهم الاجتماعية وجدة حياتهم10.
يستخدم الطب الغربي حالياً بشكل أساسي مزيجاً من الأدوية الموضعية، والأدوية الفموية، والعلاج الطبيعي، وزراعة الشعر لعلاج الثعلبة AA11,12. يشمل العلاج الموضعي بشكل أساسي محلول minoxidil والكورتيكوستيرويدات (مثل كريم fluticasone propionate)، والتي تعمل على تحفيز بصيلات الشعر وتثبيط الاستجابات المناعية الموضعية لتعزيز نمو الشعر، إلا أن الاستخدام طويل الأمد قد يؤدي إلى تفاعلات عكسية مثل ضمور الجلد13,14. أما بالنسبة للمرضى الذين يعانون من مرض مترقٍ، فيمكن لمثبطات المناعة الفموية (مثل prednisone وcyclosporine) أن تنظم الاستجابة المناعية الجهازية بفعالية، ولكن الأمر يتطلب مراقبة منتظمة لوظائف الكبد والكلى12,15. وفي العلاج الطبيعي، يعمل الإشعاع فوق البنفسجي متوسط الموجة ضيق النطاق والعلاج بالليزر منخفض الطاقة على تحسين الدورة الدموية الدقيقة للمساعدة في نمو الشعر، ولكن يتطلب ذلك جلسات علاجية متعددة، وتختلف النتيجة من شخص لآخر16,17. وبالنسبة للحالات المستعصية، يمكن لجراحة زراعة الشعر نقل بصيلات شعر صحية إلى المنطقة المصابة بالصلع، ولكن هناك خطر من فشل عملية الزراعة، كما أنها تتطلب صيانة دوائية18. تكمن مزايا علاج الطب الغربي في سرعة مفعوله ودرجة تقنيسه العالية، خاصة في حالات الثعلبة AA الموضعية المبكرة19. ومع ذلك، تشمل عيوبه القابلية للانتكاس عند استخدام الأدوية الهرمونية، والآثار الجانبية الكبيرة لمثبطات المناعة، ومحدودية فعاليتها بالنسبة لمرضى الصلع الكلي/الثعلبة الشاملة20,21. بالإضافة إلى ذلك، فإن دورة العلاج طويلة (عادة من 3–6 أشهر)، والتكلفة مرتفعة (مثل التكلفة السنوية لمثبطات JAK والعوامل البيولوجية، التي تتجاوز 100,000 يوان)، مما يحد أيضاً من تطبيقها على نطاق واسع19,22. وللأسباب العديدة المذكورة أعلاه، يرى المؤلفون حاجة ملحة لاستكشاف أدوية موجهة جديدة.
يساهم الإجهاد التأكسدي بشكل كبير في الآلية المرضية لمرض الثعلبة (AA). فخلال عملية تخليق الصبغة في الخلايا الميلانية، يتم إنتاج كمية كبيرة من بيروكسيد الهيدروجين (H2O2)23,24. وفي الظروف الطبيعية، يمكن التخلص من هذه المادة بواسطة الإنزيمات المضادة للأكسدة (مثل سوبر أكسيد ديسميوتيز (SOD) والكاتالاز (CAT))25. ومع ذلك، غالبًا ما تكون نشاطات الإنزيمات المضادة للأكسدة لدى المصابين بالثعلبة أقل، مما يؤدي إلى تراكم النواتج التأكسدية وتسبب تلف في الحمض النووي DNA وموت الخلايا المبرمج (apoptosis)26,27. ومن شأن حالة الإجهاد التأكسدي هذه أن تنشط الاستجابة الالتهابية بشكل أكبر، مما يؤدي إلى إطلاق وسائط محفزة للالتهاب (مثل TNF-α و IFN-γ)، وهو ما يشكل حلقة مفرغة من الإجهاد التأكسدي والالتهاب28. وتهاجم الاستجابة الالتهابية بصيلات الشعر عن طريق الخلايا اللمفاوية T، مما يدفع بصيلات الشعر إلى الدخول في مرحلة الراحة ثم التساقط29. وقد وجدت التجارب السريرية أن المرضى المصابين بالثعلبة غالبًا ما يعانون من أمراض مناعية ذاتية أخرى (مثل أمراض الغدة الدرقية)30، مما يشير إلى أن الخلل المناعي الجهازي يعمل كعامل محفز حاسم. بالإضافة إلى ذلك، يعزز الإجهاد التأكسدي والالتهاب معًا موت خلايا بصيلات الشعر المبرمج، ويؤدي اضطراب إشارات الموت المبرمج إلى إتلاف قدرة بصيلة الشعر على التجدد بشكل أكبر، مما يمنع نمو الشعر مجددًا31. وبناءً على ذلك، يجب أن يأخذ علاج الثعلبة في الاعتبار مضادات الأكسدة ومضادات الالتهاب وتنظيم مسارات الموت المبرمج لكسر هذه الحلقة المفرغة.
يعد الأميغدالين (AMG) مركباً غليكوزيدياً سيانوغينياً يوجد بشكل طبيعي، ويحتويه بشكل أساسي بذور النباتات التي تنتمي إلى الفصيلة الوريدية Rosaceae (مثل نواى المشمش واللوز والخوخ والسفرجل)32,33,34. وقد أظهرت الدراسات السابقة أن AMG يمكن أن يحسن حالة الصدفية من خلال تعزيز وظيفة حاجز الجلد35. وفي الوقت ذاته، فإن التأثيرات المضادة للاستماتة والإجهاد التأكسدي لـ AMG تجعل من الممكن استخدامه في علاج البهق (AA)36,37. كما أكدت الأدلة السابقة أن AMG يمكن أن يثبط الاستجابة الالتهابية لتخفيف أعراض البهق في فئران C3H/HeJ38. ومع ذلك، فإن الآلية الجزيئية التي يثبط من خلالها AMG الالتهاب ويخفف الإجهاد التأكسدي للحد من البهق لم يتم توثيقها بشكل كافٍ. وقد أوضحت هذه الدراسة بشكل أساسي أحداث الإجهاد التأكسدي التي تتوسطها إشارات صندوق فورك الرأسي O3A (FOXO3a) عن طريق التدخل بـ AMG في علاج نموذج البهق في فئران C3H/HeJ ونموذج إصابة الخلايا الميلانينية البشرية الأولية في البشرة (HPEMs) المستحثة بواسطة H2O2.
البروتوكول
الموافقة الأخلاقية والموافقة على المشاركة
تمت الموافقة على البروتوكولات التجريبية التي تشمل الحيوانات من قبل اللجنة الأخلاقية لشركة ساينتست بيوتكنولوجي المحدودة (رقم الموافقة الأخلاقية: SYST-2024-014)، وفقًا لإرشادات ARRIVE 2.0، والدليل الصادر عن المعاهد الوطنية للصحة بشأن رعاية واستخدام الحيوانات المعملية. كما منحت اللجنة الأخلاقية لمستشفى مقاطعة سيتشوان العام الموافقة على الاستخدام الأخلاقي للعينات السريرية البشرية في التجارب in vitro (رقم الموافقة الأخلاقية: 2024103). وقد تم الحصول على الموافقة المستنيرة من جميع متبرعي الأنسجة. ترد جميع التفاصيل التجارية للواحدات والتجهيزات المستخدمة في هذه الدراسة في جدول المواد.
بناء نموذج الذئبة الحمراء في فئران C3H/HeJ وإعطاء AMG
استنادًا إلى الأدبيات السابقة، تم تحفيز نموذج الذئبة الحمراء في فئران C3H/HeJ وعلاجه بـ AMG38,39. باختصار، خضعت ثلاثون فئرانة من سلالة C3H/HeJ (بأعمار 6–8 أسابيع) لفترة تأقلم لمدة أسبوع واحد قبل توزيعها عشوائيًا على خمس مجموعات مختلفة: مجموعة السيطرة، ومجموعة الذئبة الحمراء (AA)، ومجموعة الجرعة المنخفضة من AMG (AMG-L)، ومجموعة الجرعة المتوسطة من AMG (AMG-M)، ومجموعة الجرعة العالية من AMG (AMG-H). باستثناء مجموعة السيطرة، تم إنشاء نموذج الذئبة الحمراء في المجموعات الأربع الأخرى عن طريق تطبيق 0.05 غ من كريم الإميكيويمود على الجلد الظهري للفئران. تم هذا التطبيق ثلاث مرات أسبوعيًا، ليصل المجموع إلى تسع جرعات. وكانت مساحة الجلد التي طُبِق عليها الكريم 1.5 سم × 1.5 سم. وتلقت الفئران في مجموعتي السيطرة والذئبة الحمراء 0.02 مل/غ من المحلول الملحي الفسيولوجي عن طريق التغذية أنفيًا يوميًا. في المقابل، تلقت الفئران في مجموعات AMG حقنًا داخل المعدة بجرعات 60 و90 و120 مغ/كغ يوميًا على التوالي. وتستمر فترة العلاج 21 يومًا. وللرصد العام وتقييم نموذج الذئبة الحمراء، يُشترط وجود بقعة صلع دائرية واضحة بقطر ≥ 1 سم، دون وجود ندوب أو التهاب شديد، مع وجود ألياف شعر مكسورة. ويتم استبعاد الفئران التي تُظهر نتفًا منتشرًا في كامل الجسم، أو تقرحات جلدية شديدة، أو نموًا سريعًا تلقائيًا للشعر.
HPEMs
اتباعًا للطريقة السابقة40، تم اختيار أنسجة جلد سليمة من مرضى خضعوا لعملية ختان في المستشفى، وغُمرت في كحول 75% لمدة 5 دقائق. ثم غُسلت أنسجة الجلد عدة مرات بوساطة محلول PBS المحتوي على أمبيسلين (100 وحدة/مل) وكبريتات ستربتوميسين (100 ملغم/مل)، وحُضنت في محلول ديسباز II عند 4°م طوال الليل لهضمها. تم تقطيع الطبقات الأدمة المنفصلة والمعزولة إلى قطع صغيرة وترشيحها عبر غشاء معقم للحصول على معلق خلوي. وبعد الطرد المركزي، جُمعت الخلايا في الطبقة السفلية المترسبة ثم أُعيد تعليقها في وسط ميلانوسايت 254 الخالي من المصل، وأُعيد زرعها بكثافة تبلغ تقريبًا 5 × 10⁵ في قوارير زراعة، وحُضنت في حاضنة CO2. وبعد ثلاث عبوريات، استُخدمت الخلايا الصباغية النقية في التجارب اللاحقة.
إنشاء H2O2نموذج إصابة الإجهاد التأكسدي الناتج عن الميلانين في الخلايا الصباغية البشرية وتدخل AMG
يُقسَم الخلايا الصبغية البشرية التي تبلغ درجة اندماجها من 60% إلى 80% إلى مجموعة ضابطة ومجموعات مُعالجة بتركيزات مختلفة من H2س2 (200، 400، 600، 800، و 1000 µM). بعد حضن لمدة 24 ساعة، كانت قابلية الخلايا للحياة تم تقييمه باستخدام طريقة CCK-8. بعد ذلك، تم تحديد التركيز الأمثل لـ H2O2 استُخدم لإنشاء نموذج الإجهاد التأكسدي للخلايا الصبغية، وأُضيفت تراكيز مختلفة من مادة AMG (0.1، 0.25، 0.5، 1، 2.5، 5، و10 ملغ/مل) للثقافة لمدة 24 ساعة. ثم تم اختيار قابلية البقاء الخلوي لتقييم وفرز تركيز مادة AMG.
فحص الفحص النسيجي بالصبغة الهيماتوكسيلين والأيوسين
تم تثبيت أنسجة كبد وكلى الفأر في Paraformaldehyde بنسبة 4% لمدة 24 ساعة، ثم تم تضمينها بالبارافين، يتبع ذلك عملية تجفيف بالخطوات التالية: إيثانول 70% لمدة 4 ساعات، إيثانول 80% لمدة ساعتين، إيثانول 90% لمدة ساعتين، إيثانول 95% لمدة ساعتين، الإيثانول اللا مائي مرتين، كل مرة لمدة ساعة؛ الزايلين مرتين، كل مرة لمدة 30 دقيقة38,39,41. ثم، 4-µm خضعت المقاطع الشمعية لاختبار H&تم تجفيف الأنسجة المصبوغة بصبغة #38;E، وتنقيتها، وتركيبها باستخدام صمغ محايد. واستُخدم ماسح ضوئي من طراز 3D HISTECH لتحويل المقاطع النسيجية إلى صور رقمية، وتم الحصول على الصور عند تكبير 20× و40× تم التقاط التكبيرات.
التحليل المناعي المرتبط بالإنزيم (إليسا) والكشف الكيميائي الحيوي
تم تجهيز أنسجة الجلد في محلول مخزني بنسبة 1:9 (وزن/حجم)، ثم طُورت بالطرد المركزي عند 1006–1789 × g لمدة 10 دقائق. بعد تحديد كمية البروتين في المصل واستخلاص أنسجة الجلد والمطافي الخلوية باستخدام طريقة BCA، تم تقييم مستويات MDA وIL-6 وIL-15 وIFN-γ باستخدام مجموعات إليسا المقابلة. وتم الكشف عن أنشطة الإنزيمات SOD وCAT وGPX-4 وفقًا لتعليمات مجموعات الكشف الكيميائي الحيوي الخاصة بكل منها.
مطيافية تدفق للكشف عن أنواع الأكسجين التفاعلية (ROS)
استُخدم وسط زرعي خالٍ من المصل لتخفيف DCFH-DA بتركيز 10µM بنسبة 1:1000. ثم تم تحضير أنسجة جلد الفأر أو الخلايا الصبغية البشرية إلى علائق خلوية بتركيز 1–20×106 خلية/مل باستخدام DCFH-DA بتركيز 10µM. تم حضن الخلايا عند 37°م لمدة 20 دقيقة. خلال هذه الفترة، تم هز الخلطات ومزجها كل 3–5 دقائق. بعد ثلاث غسلات باستخدام الوسط الخالي من المصل، تم قياس مستويات أنواع الأكسجين التفاعلية داخل الخلايا باستخدام مطيافية التدفق، مع ضبط أطوال موجات الإثارة والانبعاث عند 488 نانومتر و525 نانومتر على التوالي42,43.
قياس المناعة بال fluorescein
تُركت الأجسام المضادة الأولية FOXO3a (1:1000) للتفاعل مع 4-µm أقسام أنسجة الجلد أو HPEMs مثبتة طوال الليل عند 4°Cثم عُوملت العينات بوجود الأجسام المضادة الثانوية الموسومة بواصفات الفلورسنت أليكسا فلور، وصُبغت تلوينًا معاكسًا بحل دابي. وأخيرًا، شُوهدت المقاطع وصُورت باستخدام المجهر الفلورسنت. ولتصوير الفلورسنت مع أنواع الأكسجين التفاعلية (ROS)، تم استخدام 4-µm تم إعادة تدفئة قطعة الأنسجة الجلدية المجمدة أو شرائح HPEMs عند درجة حرارة الغرفة وتجفيفها. تم رسم دائرة حول النسيج باستخدام قلم نسيجي كيميائي. عُوملت الشرائح بعامل قمع الفلورة الذاتية لمدة 5 دقائق، ثم شُطبت تحت ماء جاري لمدة 10 دقائق. تم إضافة محلول صبغة أنواع الأكسجين التفاعلية (ROS) وتم التحضين في الظلام عند 37°C لمدة 30 دقيقة. خضعت الشرائح لثلاث غسلات مدتها 5 دقائق كل منها في محلول ملحي مخزن بالفوسفات (PBS) باستخدام جهاز هزاز لإزالة اللون. ثم طُبِق محلول صبغة DAPI وتم التحضين لمدة 10 دقائق في الظلام ودرجة حرارة الغرفة. تم إغلاق الشرائح باستخدام وسط مانع للإضاءة الفلورية. ثم تم فحص العينات وجمع الصور باستخدام المجهر الفلوري. تبلغ مقاييس الإثارة/الانبعاث 330–380/420 نانومتر لـ DAPI و510–560/590 نانومتر لـ Cy3.
البلوت الغربي
بالنسبة لنسج جلد الفأر أو الخلايا الصبغية البشرية، 50 مغ من نسيج الجلد أو 2 × 10⁵ الخلايا و1 مل من محلول تحليل RIPA، المُعزز بمحفزات البروتياز، أُضيفا إلى أنبوب ميكروسيتريفيوج سعة 1.5 مل. بعد وضع العينة في حمام ثلجي لمدة 30 دقيقة، أُجريت طَرد مركزي لمدة 5 دقائق عند 12,000 × جاذبية لجمع الكسر العلوي. بعد تحديد تركيز البروتين بطريقة BCA، خُلط محلول البروتين مع 5× تم مزج عازل التحميل SDS بنسبة حجمية مقدارها 4:1، ثم غُلي المزيج في حمام معدني عند 95 °C لمدة 5 دقائق. بعد إجراء الترحيل الكهربائي للعينة باستخدام هلام البولي أكريلاميد في وجود دوديسيل كبريتات الصوديوم (SDS-PAGE) بنسبة 10٪ عند جهد 80 فولت أو 120 فولت، تم نقل البروتينات كهربائيًا إلى غشاء نيتروسلولوز بحجم 0.22-µm غشاء PVDF بتيار ثابت مقداره 200 مللي أمبير لمدة 1 ساعة44,45تم حجب الأغشية بعد ذلك عند درجة حرارة الغرفة وعلى هزاز طردي لمدة ساعة واحدة باستخدام حليب منزوع الدسم بنسبة 5٪ (محضر بخليط مخفف TBST). ثم عُرضت الأغشية على أضداد أولية محددة لـ التعقيد الرئيسي للتتوافق النسيجي من الفئة الأولى (MHC I) (1:1000)، IFN-γ (1:1000)، IL-6 (1:1000)، IL-15 (1:1000)، β-أكتين (1:1000)، سوبراوكسيد ديسموتاز (SOD) (1:1000)، كاتاليز (CAT) (1:1000)، جلوتاثيون بيروكسيديز 4 (GPX-4) (1:1000)، وFOXO3a (1:1000) عند 4 °C طوال الليل. ثم عُوملت الأغشية بالجسم المضاد الثانوي (1:10000) لمدة ساعة عند درجة حرارة الغرفة. واستُخدم كاشف كيمياء التألّم الضوئي (ECL) لتطوير الصور وتسجيلها باستخدام جهاز ChemiScope 6100.
التفاعل المتسلسل للبوليميراز العكسي الكمي (qRT-PCR)
أولاً، تم الحصول على عينة الحمض النووي الريبي (RNA) من نسيج جلد الفأر أو من الخلايا الصبغية البشرية وفقًا لتعليمات الشركة المصنعة لطقم استخلاص الحمض النووي الريبي الكلي. وفقًا لتعليمات التشغيل الخاصة بطقم النسخ العكسي، تم ضبط معايير جهاز تفاعل البوليميراز المتسلسل (PCR) على 25°C لمدة 10 دقائق، 42°C لمدة 15 دقيقة، و 85°C لمدة 5 دقائق للحصول على عينات الحمض النووي المتمم (cDNA). بالمثل، كانت المعايير المستخدمة لإعداد جهاز تفاعل البلمرة المتسلسل (PCR) كما يلي للحصول على عدد كافٍ من نسخ الحمض النووي: التحلل الحراري الأولي: 95°C لمدة 5 دقائق، دورة واحدة؛ تميؤ: 95°C لمدة 10 ثوانٍ، 40 دورة؛ التلدين والامتداد: 60°C لمدة 30 ثانية، 40 دورة. يتم حساب التعبير الطبيعي للجين محل الاهتمام باستخدام الصيغة التالية: 2‑ΔΔCq (ΔΔCq = Cqهدف-القيمة Cqβأكتين)46,47. تُعرض المعلومات الخاصة بتسلسلات أولي الجينات لتفاعل البوليميراز المتسلسل الكمي العكسي (qRT-PCR) في الجدول 1.
تحليل ChIP-PCR
أُجري تحليل ChIP-PCR وفقًا للبروتوكول السابق48أولاً، تم ربط الخلايا تصالبيًا باستخدام 1% فورمالدهيد لمدة 10 دقائق، ثم أُضيف محلول الجلايسين لإنهاء تفاعل الربط التصالبي. بعد غسل الخلايا ب محل مخفف ملحي فوسفاتي مبرد مسبقًا يحتوي على PMSF، تم تحليل الخلايا باستخدام محلول تحليل يحتوي على SDS وPMSF. بعد ذلك، تم تقطيع الحمض النووي الكروماتيني إلى قطع تتراوح أطوالها بشكل رئيسي بين 200 و1000 زوج قاعدي باستخدام جهاز تكسير خلوي بالموجات فوق الصوتية، وتم التحقق من حجم القطع باستخدام الترحيل الكهربائي على هلام الأجاروز. ثم أُعيد تعليق عينات الكروماتين المقطعة في محلول تخفيف الـChIP الذي يحتوي على PMSF، و 20µL تم أخذ جزء من العينة كمجموعة ضبط المدخلات. وخضعت العينات المتبقية لعلاج مسبق بـ Protein A+G Agarose/حمض ديوكسي ريبونوكليك للحيوانات المنوية للسلمون. ثم، 0.5µg تم تطبيق كمية من الجسم المضاد الأولي، تليها حضن ليلة كاملة عند 4°C مع هز بطيء. عُوملت مجموعة الضبط السلبية بكمية مساوية من الغلوبيولين المناعي الأرنب IgG. في اليوم التالي، أُضيفت كريات الأجاروز البروتين A+G لالتقاط مركبات المستضد-الضد، ثم غُسلت المركبات تباعًا بمحفز غسل المركب المناعي منخفض الملح، ومحفز غسل المركب المناعي عالي الملح، ومحفز غسل المركب المناعي LiCl، ومحفز TE. استخرجت المركبات المستcipitated مناعيًا باستخدام محفز الاستخلاص، وخضع كل من منتجات الاستخلاص والعينات في مجموعة ضبط المدخلات لعلاج حراري مكون من 65°C لمدة 4 ساعات لتفكيك الروابط العرضية. بعد ذلك، تم عزل الحمض النووي من خلال الاستخلاص بالفينول-كلوروفورم تلاه ترسيب الإيثانول. ثم تم إذابة الحمض النووي النقي في محلول TE واستخدامه في تحليل qRT-PCR اللاحق. وتشير معلومات تسلسل الجين لتفاعل ChIP-PCR إلى الجدول 2.
تم اختيار المواقع الجينومية المرشحة لتفاعل البوليميراز المتسلسل بعد التضخيم المناعي للحمض النووي (ChIP-PCR) من خلال التنبؤ الحاسوبي باستخدام قاعدة بيانات JASPAR (https://jaspar.elixir.no/). على وجه التحديد، استعاد الباحثون تسلسلات المُحفِّزات التي تمتد على مسافة 2000 زوج قاعدي قبل نقطة بدء النسخ (TSS) للجين CAT, SOD، و GPX4 الجينات. تم فحص هذه التسلسلات بحثًا عن عناصر ربط FOXO3a باستخدام مصفوفة الأوزان الموضعية المقابلة. ولتحقيق توازن بين الحساسية والخصوصية، حدد المؤلفون عتبة درجة نسبية للملف الشخصي بمقدار >80%. من بين جميع البقع التنبؤ بها التي تحقق هذا المعيار، انتقى المؤلفون أعلى بقعتين تنبؤًا من حيث الدرجة لكل جين باعتبارهما منطقتين مرشحتين للتحقق من صحتهما باستخدام تفاعل البلمرة المتسلسل المنقح بالترسيب المناعي (ChIP-PCR). على سبيل المثال، في الـ CAT الجين، كانت المواقع المختارة تقع عند -733 زوج قاعدي و-1259 زوج قاعدي بالنسبة لموقع بدء النسخ (TSS). ويُعد الجسم المضاد المضاد لـFOXO3a المستخدم في هذه الدراسة جسمًا مضادًا تجاريًا متوفرًا ومخصصًا لتقنية تحليل الاستخلاص المناعي للصبغي (ChIP-grade). ولضمان التخصصية، استخدم المؤلفون تحكمين سلبيين مستقلين في كل تجربة من تجارب تضخيم الحمض النووي بالبوليمراز المتسلسل بعد الاستخلاص المناعي للصبغي (ChIP-PCR):一个是 الجسم المضاد المناعي من النوع IgG، والآخر هو موقع جينومي سلبي. أُجري التحكم بواسطة النوع IgG كاستخلاص مناعي متوازٍ باستخدام الجسم المضاد غير المناعي IgG من نفس النوع. أما بالنسبة للموقع الجينومي السلبي، فقد صمّم المؤلفون زوجًا محددًا من البدائل (primers) يستهدف منطقة غير مرتبطة تمامًا ولا تحتوي على أي نمط توافقي مُتنبأ به لـFOXO3a. وقد مكّن هذا الموقع التحكّمي المؤلفين من استبعاد أي تثبيط ناتج عن تكسير عشوائي للصبغين أو تضخيم غير تخصصي عبر تفاعل البوليميراز المتسلسل (PCR). وتم حساب درجة التثبيط باستخدام استراتيجية تطبيع مكونة من ثلاث خطوات.
الخطوة 1: أدخل قيمة ΔCt المعيّنة، ΔCt [IP المعيّن] = Ct[IP]-(Ct[Input]-log₂(DF)) (1)
ΔCt [IgG مُعَيَّر] = Ct[IgG] - (Ct[Input] - log₂(DF)). (2)
عامل التخفيف (DF) = عامل تخفيف العينة المدخلة؛ في التجربة، كان عامل التخفيف (DF) = 10، لأنهم استخدموا عينة مدخلة بنسبة 10%.
الخطوة 2: ΔΔCt بين IP وIgG:
ΔΔCt [IP/IgG] = ΔCt [IP المُعَيَّر] - ΔCt [IgG المُعَيَّر] (3)
الخطوة 3: تضخيم الطي = 2(-ΔΔCt [IP/IgG]). (4)
التحليل الإحصائي
تعبر البيانات عن المتوسط ± الانحراف المعياري بناءً على حد أدنى من ثلاث تجارب مستقلة. أُجري التحليل الإحصائي باستخدام برنامج GraphPad Prism (الإصدار 6.0). تم تقييم مقارنة البيانات بين مجموعات متعددة تتبع التوزيع الطبيعي وتجانس التباين باستخدام تحليل التباين الأحادي الاتجاه (ANOVA)، يليه اختبار توكي اللاحق. واعتبرت الدلالة الإحصائية عند p < 0.05.
النتائج
لا يسبب AMG سمية كبدية كلوية في فئران C3H/HeJ الطبيعية
لتحديد السمية المحتملة لـ AMG على الكبد والكلى بوضوح من منظور تجريبي، قام الباحثون بإعطاء ثلاث جرعات (60 و90 و120 mg/kg) سبق دراستها في فئران C3H/HeJ طبيعية عن طريق التغذية القسرية 38. وكما هو موضح في الشكل 1، فإنه بعد الإعطاء داخل المعدة لـ AMG بثلاث جرعات لمدة 21 يوماً، كانت بنية الفصيصات الكبدية واضحة، مع ترتيب الخلايا الكبدية بشكل منتظم. وكانت الأنسجة القشرية والنخاعية للكلى طبيعية، ولم يُلاحظ وجود أي تلف أو آفات في الكبيبات أو الأنابيب الكلوية. وخلال فترة إعطاء AMG، لم تظهر على أي من الفئران مظاهر سلوكية غير طبيعية. وبالفعل، لم يتم في هذا البحث اختبار بيانات السمية البيوكيميائية أو وزن الجسم، وهو ما قد يؤثر على منطقية استنتاج عدم وجود سمية كبدية وكلوية لـ AMG. ومع ذلك، وبناءً على نتائج الفحص الهستوباثولوجي للكبد والكلى، تشير هذه البيانات جزئياً إلى أن علاج AA باستخدام AMG بالجرعات التي حددها المؤلفون هو أمر منطقي.
يعمل AMG على تثبيط حدوث وتطور AA، بالإضافة إلى تثبيط توليد ROS.
أولاً، قاموا بقياس مؤشرات MHC I وIL-15 التي تكون مرتبطة ارتباطاً وثيقاً ببدء وتطور من AA. وكما هو موضح في الشكل 2A–Cوفي ظل الظروف المرضية لمحاكاة التهاب الجلد التأتبي (AA)، زادت كمية بروتينات MHC I وIL-15 في الأنسجة الجلدية لفئران من سلالة C3H/HeJ بشكل ملحوظ (p < 0.001). بينما أدت المعالجات بـ AMG-M و AMG-H إلى خفض مستويات تعبير هذين البروتينين بشكل ملحوظ (p < 0.01 أو p < 0.001). وبالمثل، أدت الجرعات الثلاث من علاج AMG إلى تثبيط مستوى IL-15 في المصل بشكل ملحوظ (p < 0.001, الشكل 2Dعلاوة على ذلك، أشارت نتائج التألق المناعي إلى وجود كمية كبيرة من أنواع الأكسجين التفاعلية (ROS) في جلد الفئران في مجموعة AA، بينما أدى التدخل باستخدام AMG إلى خفض تعبير ROS بشكل ملحوظ مقارنة بمجموعة AA (p < 0.001, الشكل 2E و (F). وبشكل متسق، أظهرت نتائج قياس التدفق الخلوي أن مستويات أنواع الأكسجين التفاعلية (ROS) في أنسجة الجلد لدى مجموعة AA كانت مرتفعة بشكل ملحوظ مقارنة بـ مجموعة الضبط. ومع ذلك، وبالمقارنة مع مجموعة AA، أدى التدخل باستخدام AMG إلى عكس الزيادة في أنواع الأكسجين التفاعلية (ROS (p < 0.001, الشكل 2G و هـ).
حفز AMG التعبير البروتيني والجيني لـ FOXO3a
للبحث في تأثير AMG على FOXO3a، اختبر المؤلفون مستويات تعبيره على المستويين البروتيني والجيني. وقد أظهرت نتائج التألق المناعي أن مجموعة AA شهدت انخفاضاً ملحوظاً في تعبير بروتين FOXO3a، بينما حفز AMG مستوى بروتين FOXO3a في الأنسجة الجلدية لفئران C3H/HeJ (p < 0.001, الشكل 3-أ و Bوتشير بيانات qRT-PCR الإضافية إلى أن AMG أدى إلى زيادة تعبير جين FOXO3a بشكل ملحوظ (p < 0.001; الشكل 3جوبالمثل، أشارت تجربة لطخة ويسترن (Western blot) إلى أن AMG ارتفع بشكل كبير التعبير البروتيني لـ FOXO3a (p < 0.05 أو p < 0.001, الشكل 3D و هـ).
ثبط AMG أحداث الإجهاد التأكسدي في أنسجة الجلد لفئران AA
يؤدي التطور المرضي لـ AA المحفز بالإجهاد التأكسدي إلى تدهور الحالة. وتظهر نتائج الاختبارات البيوكيميائية في الشكل 4 أنه مقارنة بالمجموعة الضابطة، تم تثبيط مؤشرات مضادات الأكسدة SOD و CAT و GPX-4 بشكل ملحوظ في أنسجة الجلد للفئران في مجموعة AA (p < 0.001، الشكل 4A و B)، بينما ارتفع مؤشر التأكسد MDA بشكل كبير (p < 0.001، الشكل 4C). وكما كان متوقعاً، وجد الباحثون أنه بعد العلاج بـ AMG، زادت مؤشرات مضادات الأكسدة بشكل ملحوظ، بينما انخفضت مؤشرات التأكسد بشكل ملحوظ (p < 0.001؛ الشكل 4A–C). وبالمثل، أشارت بيانات Western blot أيضاً إلى أن تدخل AMG زاد بشكل ملحوظ من مستويات التعبير البروتيني لمؤشرات مضادات الأكسدة SOD و CAT و GPX-4 (p < 0.001؛ الشكل 4D و 4E).
خفّض AMG من عمليات الموت الخلوي المبرمج والأحداث الالتهابية في خلايا HPEMs الناتجة عن H2O2
تشير النتائج الموضحة في الشكل 5A إلى أن تركيزات H2O2 المتزايدة (200–1000 µM) أضعفت تدريجياً من حيوية خلايا HPEMs (p < 0.001). وكان من بينها تركيز 600 µM من H2O2 هو التركيز الأكثر ملاءمة لتقليل حيوية خلايا HPEMs (p < 0.001). علاوة على ذلك، وجد المؤلفون أنه في ظل ظروف تحفيز خلايا HPEM بتركيز 600 µM من H2O2، استطاع AMG بتركيزات 0.1–10 mg/mL زيادة حيوية الخلايا بشكل ملحوظ (p < 0.05 أو p < 0.001، الشكل 5B). وتماشياً مع نتائج التجارب الحيوانية، وجد المؤلفون أيضاً أن AMG ثبّط بشكل ملحوظ الموت الخلوي المبرمج الناجم عن H2O2 في خلايا HPEMs، كما هو موضح في تحليل قياس التدفق الخلوي للكشف عن الموت الخلوي المبرمج في الشكل 5C وD (p < 0.001). وبالنسبة لمؤشر MHC I، أظهر تحليل لطخة ويسترن (Western blot) أن AMG كبح بشكل ملحوظ التعبير البروتيني في خلايا HPEMs التي تعرضت لإصابة ناتجة عن H2O2 (p < 0.05 أو p < 0.01؛ الشكلين 5E و5F). وفيما يخص الكشف عن العوامل الالتهابية، أشارت نتائج مقايسة الممتص المناعي المرتبط بالإنزيم (ELISA) إلى أن AMG خفّض بشكل ملحوظ من وفرة السيتوكينات المحفزة للالتهابات، بما في ذلك IFN-γ وIL-6 وIL-15، في خلايا HPEMs الناتجة عن H2O2 (p < 0.001؛ الشكل 5G). علاوة على ذلك، تم التحقق من تثبيط AMG لهذه البروتينات الثلاثة المحفزة للالتهابات عبر تحليل لطخة ويسترن، كما هو معروض في الشكل 5H وI (p < 0.01 أو p < 0.001).
أدى AMG إلى خفض مستويات أنواع الأكسجين التفاعلية (ROS) في الخلايا الظهارية الميزوتيلية البشرية (HPEMs) المستحثة بواسطة H2أو2
بالمقارنة مع خلايا HPEM التي لم تُعالج بـ H2أو2 وAMG، فإن التحفيز بواسطة 600 µM هـ2O2 عزز بشكل ملحوظ إنتاج أنواع الأكسجين التفاعلية (ROS)، كما ظهر في نتائج التألق المناعي (p < 0.001, الشكل 6A و B) وتجارب قياس التدفق الخلوي (p < 0.001, الشكل 6ج و د)، على التوالي. ومن المثير للاهتمام أن AMG خفض بشكل ملحوظ كمية أنواع الأكسجين التفاعلية (ROS (p < 0.001, الشكل 6).
حدّت مادة AMG من حدث الإجهاد التأكسدي في الخلايا الظهارية الرئوية البشرية (HPEMs) المستحث بواسطة H2أو2
وبالمثل، قام المؤلفون بتقييم كيفية تأثير AMG على الإجهاد التأكسدي في الخلايا الظهارية الرئوية البشرية (HPEMs) المستحث بواسطة H2أو2مقارنةً بالمجموعة الضابطة، فإن H2أو2 أدى التحفيز إلى انخفاض في وظائف SOD وCAT وGPX-4 (p < 0.001, الشكل 7A و B)، بينما أدت إلى زيادة مستويات الـ MDA بشكل ملحوظ (p < 0.001, الشكل 7Cومن المثير للدهشة أن تدخل AMG أدى إلى تعزيز أنشطة SOD وCAT وGPX-4 بشكل ملحوظ (p < 0.001, الشكل 7-أ و B)، مع خفض مستوى مالون ديلديهيد (MDA) (p < 0.001, الشكل 7ج). كما أثبتت نتائج تحليل لطخة ويسترن (Western blot) الإضافية أن التدخل باستخدام AMG أدى إلى زيادة معنوية في التعبير البروتيني لكل من SOD وCAT وGPX-4 (p < 0.05 أو p < 0.01, الشكل 7D و هـ).
عزز AMG مستوى FOXO3a وإنزيمات SOD وCAT وGPX-4 التي ينظمها FOXO3a في الخلايا الظهارية للمؤخرة البشرية (HPEMs) والمستحثة بواسطة H2O22O2
مقارنةً بالمجموعة الضابطة، فإن H2أو2 أدى التحفيز إلى انخفاض ملحوظ في تعبير جين FOXO3a (p < 0.001, الشكل 8أ)، بينما أدى التدخل باستخدام AMG إلى تخفيف هذا التأثير بشكل ملحوظ (p < 0.05, الشكل 8أ). ومزيد من تحليل لطخة ويسترن (p < 0.05, الشكل 8B و كربون) والتألق المناعي (p < 0.05, الشكل 8D و هـأكدت التحليلات أيضاً أن تطبيق AMG أدى إلى زيادة التعبير البروتيني لـ FOXO3a بشكل كبير. كما أكدت تجربة ChIP-PCR أن AMG يمكن أن يعزز مستويات التعبير لـ SOD (p < 0.001)، وCAT (p < 0.01) وGPX-4 (p < 0.01)، كما هو موضح في الشكل 8F–أنا، بالإضافة إلى مستوى إثراء FOXO3a عند محفزات SOD (p < 0.001)، وCAT (p < 0.001) وGPX-4 (p < 0.001) (الشكل 8J–L).
قام AMG بتثبيط الإجهاد التأكسدي وظواهر الموت الخلوي المبرمج في خلايا HPEMs والمنظمة بواسطة FOXO3a والمحفزة بواسطة H2O2
في البداية، أنشأ الباحثون خط خلايا HPEM ذو تعبير منخفض لـ FOXO3a، والذي تميز بانخفاض كبير في مستويات التعبير البروتيني (p < 0.001، الشكل 9A وB) والتعبير الجيني (p < 0.001، الشكل 9C) لـ FOXO3a. وأشارت نتائج قياس التدفق الخلوي كذلك إلى أن AMG، مقارنة بمجموعة H2O2، قد خفض بشكل ملحوظ مستويات ROS والموت الخلوي المبرمج في خلايا HPEMs ذات التعبير المنخفض لـ FOXO3a (p < 0.001، الشكل 9D–G). وفي الوقت ذاته، زاد AMG بشكل كبير من التعبير البروتيني والجيني لـ FOXO3a (p < 0.01، الشكل 9H–J) ومستويات تعبير بروتينات SOD وCAT وGPX-4 المنظمة بواسطة FOXO3a (p < 0.05، أو p < 0.01، أو p < 0.001، الشكل 9H، K–O) والجينات المقابلة لها في خلايا HPEMs ذات التعبير المنخفض لـ FOXO3a.
توافر البيانات:
جميع البيانات الخام متاحة في مستودع البيانات العام عبر الرابط التالي https://doi.org/10.5281/zenodo.22090466.
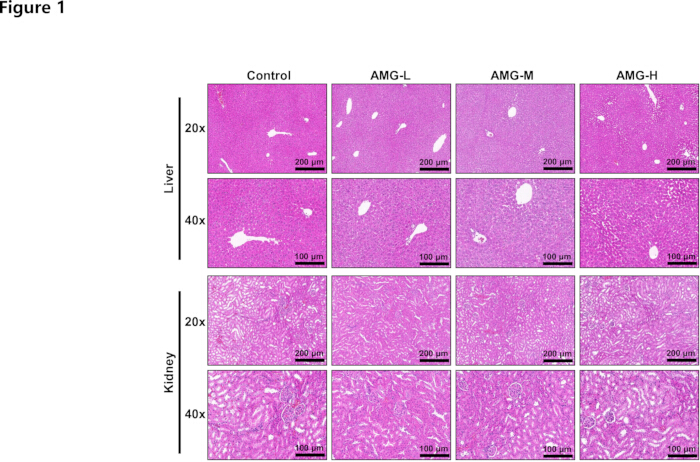
الشكل 1: صبغ الهيماتوكسيلين والإيوزين (HE staining). استُخدم صبغ HE لتقييم السمية المعتمدة على الجرعة لـ AMG (60 و90 و120 mg/kg) على الكبد والكلى في فئران C3H/HeJ الطبيعية. لم يُلاحظ أي ضرر باثولوجي محدد في الكبد والكلى تحت تكبير 20× (200 µm) و40× (100 µm). n = 6. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
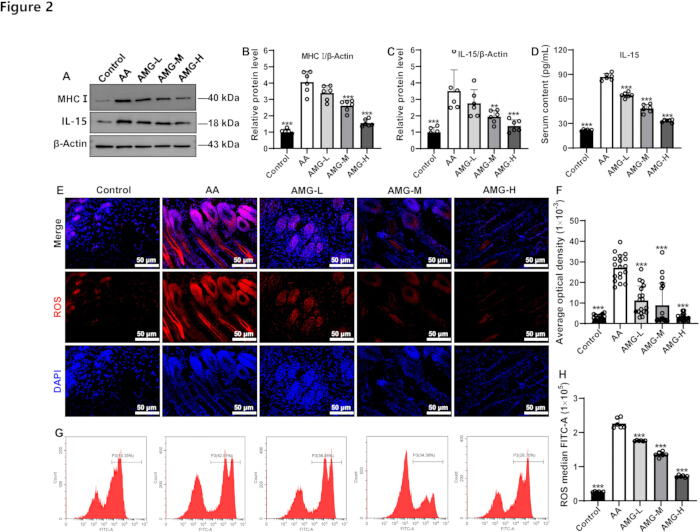
الشكل 2تأثيرات AMG على MHC I وIL-15 وROS في عينات جلد الفئران المصابة بـ AA. (أ-ج)، خفّض AMG مستويات التعبير البروتيني لكل من MHC I وIL-15، وفقاً لما تم تقييمه بواسطة لطخة ويسترن (Western blot). (د)، وانخفض مستوى AMG مستويات IL-15 في مصل الفئران.هـ و ف)، خفّض AMG مستويات أنواع الأكسجين التفاعلية (ROS) في عينات من جلد الفئران، وفقاً لما كشف عنه مقايسة التألق المناعي (IF). (ج و هـ)، حيث خفض AMG مستويات أنواع الأكسجين التفاعلية (ROS) في عينات جلد الفئران، وفقاً لما تم تحديده بواسطة قياس التدفق الخلوي. وتُعرض النتائج التجريبية في شكل متوسط ± الانحراف المعياري. **p < 0.01 و ***p < 0.001 مقابل مجموعة AA؛ العدد = 6. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
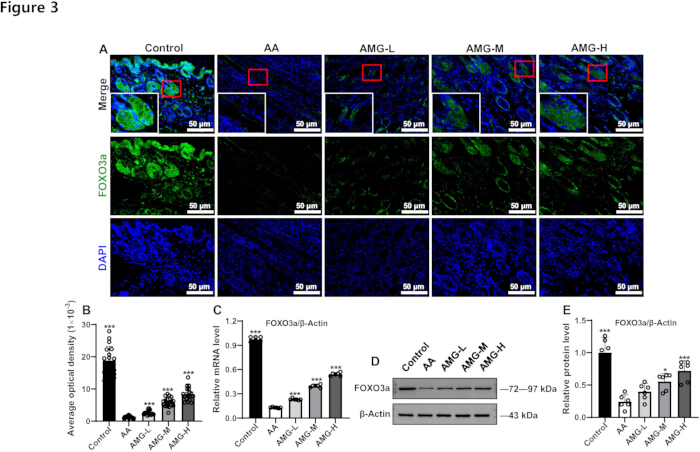
الشكل 3: تأثيرات AMG على مستويات بروتين وجين FOXO3a في عينات جلد الفئران المصابة بـ AA. (A) أدى AMG إلى زيادة مستويات بروتين FOXO3a، وفقاً لتقييم مقايسة IF. (B) النتائج الكمية لـ IF. (C) أدى AMG إلى زيادة التعبير الجيني لـ FOXO3a. (D) أدى AMG إلى زيادة التعبير البروتيني لـ FOXO3a، كما تم الكشف عنه بواسطة Western blot. (E) النتائج الكمية لـ Western blot. تم عرض النتائج التجريبية في شكل mean ± SD. *p < 0.05 و ***p < 0.001 مقارنة بمجموعة AA؛ n = 6. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
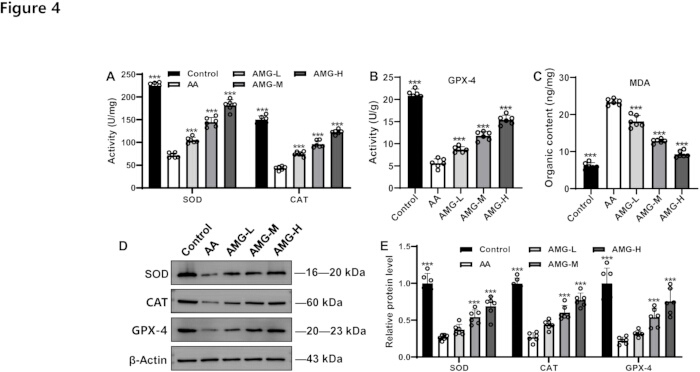
الشكل 4: تأثيرات AMG على مؤشرات الإجهاد التأكسدي في عينات الجلد لفئران AA. (A) حفز AMG مستويات SOD و CAT، كما تم تقييمه باستخدام مجموعة أدوات الاختبار الكيميائي الحيوي. في (B) و (C)، زاد AMG من مستويات GPX-4 وثبط مستويات MDA. (D) حزم بروتينية ممثلة لـ SOD و CAT و GPX-4. (E) النتائج الكمية للتعبير البروتيني لـ SOD و CAT و GPX-4. عُرِضت النتائج التجريبية في شكل المتوسط ± SD. ***p < 0.001 مقارنة بمجموعة AA؛ n = 6. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
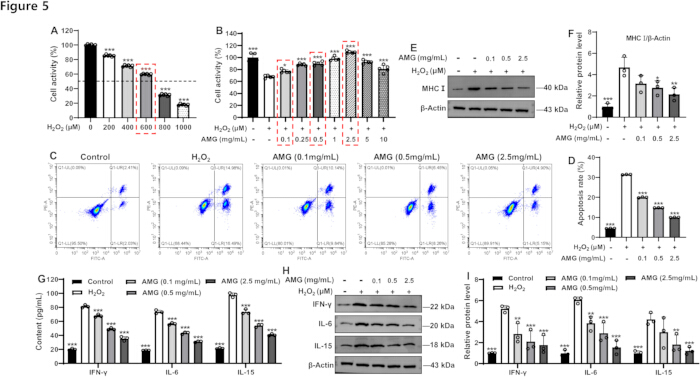
الشكل 5: تأثيرات AMG على مؤشرات موت الخلايا المبرمج والالتهابات في خلايا HPEMs المستحثة بواسطة H2O2. (A) تأثيرات تركيزات مختلفة من H2O2 على حيوية خلايا HPEMs (n = 6). (B) تأثيرات تركيزات مختلفة من AMG على قدرة بقاء خلايا HPEMs المستحثة بتحفيز H2O2 (n = 6). (C) تم استخدام تحليل قياس التدفق الخلوي لتقييم موت الخلايا المبرمج بوساطة AMG في خلايا HPEMs المستحثة بتحفيز H2O2. (D) النتائج الإحصائية لموت الخلايا المبرمج. (E) حزمة Western blot لبروتين MHC I. (F) النتيجة الكمية للتعبير النسبي لبروتين MHC I. (G) تأثيرات AMG على IFN-γ وIL-6 وIL-15 في خلايا HPEMs المستحثة بتحفيز H2O2. (H) حزم Western blot لبروتينات IFN-γ وIL-6 وIL-15. (I) النتيجة الكمية للمستوى النسبي لبروتينات IFN-γ وIL-6 وIL-15. تُمثل النتائج التجريبية في صورة mean ± SD. *p < 0.05، و**p < 0.01 و***p < 0.001 مقارنة بمجموعة H2O2؛ n = 3. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
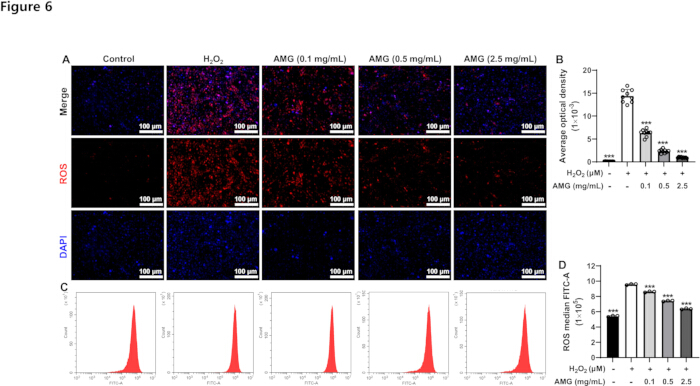
الشكل 6: تأثيرات AMG على أنواع الأكسجين التفاعلية (ROS) في خلايا HPEMs التي تم تحفيزها بواسطة H2O2. (A) الصورة الفلورية لـ ROS. (B) النتائج الإحصائية الكمية للفلورة الخاصة بـ ROS. (C) صورة قياس التدفق الخلوي لـ ROS. (D) النتائج الإحصائية الكمية لقياس التدفق الخلوي لـ ROS. عُرضت النتائج التجريبية في شكل المتوسط ± SD. ***p < 0.001 مقارنة بمجموعة H2O2؛ n = 3. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
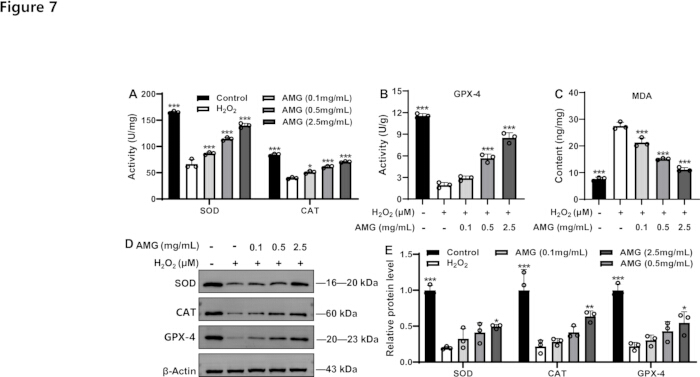
الشكل 7: تأثيرات AMG على مؤشرات الإجهاد التأكسدي في خلايا HPEMs المحفزة بواسطة H2O2. تم قياس مستويات SOD، (A) وCAT، (B) وGPX-4، و(C) وMDA في خلايا HPEMs باستخدام أطقم الكيمياء الحيوية أو أطقم ELISA. نطاقات تحليل Western blot لـ SOD وCAT وGPX-4 (D)، ونتائجها الكمية (E). تم عرض النتائج التجريبية كمتوسط ± SD. *p < 0.05، و**p < 0.01 و ***p < 0.001 مقارنة بمجموعة H2O2؛ n = 3. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
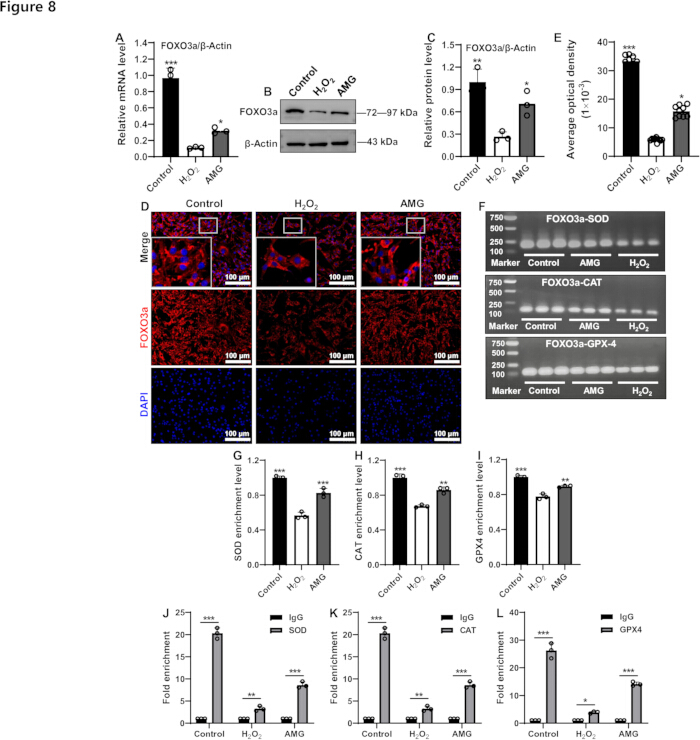
الشكل 8: تأثيرات AMG على FOXO3a في خلايا HPEMs المستحثة بـ H2O2. (A) مستوى تعبير جين FOXO3a. نطاقات لطخة ويسترن لبروتين FOXO3a (B) ونتائجها الكمية (C). الصورة الفلورية لبروتين FOXO3a (D) والنتائج الإحصائية الكمية للفلورة (E). (F) أنماط الفصل الكهربائي التمثيلية لتقنية ChIP-PCR لكل من FOXO3a-SOD و FOXO3a-CAT و FOXO3a-GPX-4. التحليل الكمي لقيم الرمادي لنطاقات ChIP-PCR لـ SOD (G) و CAT (H) و GPX-4 (I). تم الكشف عن مستويات إثراء FOXO3a عند محفزات SOD (J) و CAT (K) و GPX-4 (L) بواسطة ChIP-PCR. عُرضت النتائج التجريبية في شكل المتوسط ± SD. *p < 0.05، و **p < 0.01 و ***p < 0.001 مقارنة بمجموعة H2O2، أو مقارنة بالمجموعات المحددة؛ n = 3. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
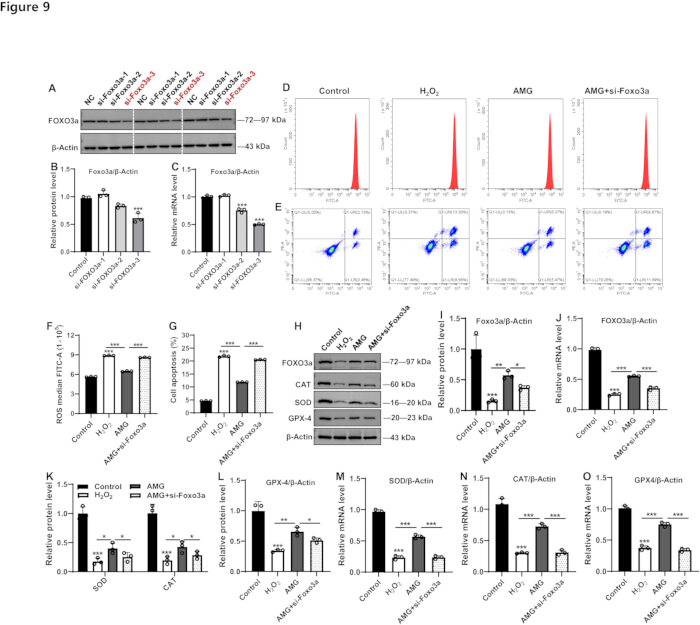
الشكل 9: تأثيرات AMG على الإجهاد التأكسدي وموت الخلايا المبرمج في خلايا HPEMs ذات التعبير المنخفض عن FOXO3a ومحفزات H2O2. (A) حزم لطخة ويسترن لـ FOXO3a ونتيجتها الكمية (B). (C) النتيجة الكمية للتعبير عن mRNA لـ FOXO3a. (D) مخطط قياس التدفق الخلوي لـ ROS وموت الخلايا المبرمج (E). والنتائج الإحصائية المرتبطة بها (F و G). (H) حزم لطخة ويسترن لـ FOXO3a و SOD و CAT و GPX-4. (I) النتيجة الكمية للتعبير البروتيني لـ FOXO3a. (J) النتيجة الكمية للتعبير عن mRNA لـ FOXO3a. (K و L) النتائج الكمية للتعبير البروتيني لـ SOD و CAT و GPX-4. النتائج الكمية للتعبير الجيني لـ SOD (M) و CAT (N) و GPX-4 (O). يتم عرض النتائج التجريبية في شكل المتوسط ± SD. *p < 0.05، و **p < 0.01، و ***p < 0.001 مقابل المجموعة الضابطة، أو مقابل المجموعات المحددة؛ n = 3. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
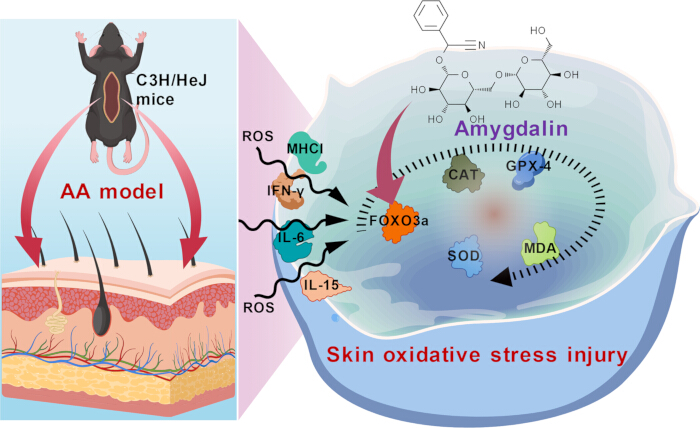
الشكل 10: مخطط توضيحي. يوضح هذا المخطط الآلية التي يحفز بها AMG تعبير FOXO3a، مما يؤدي إلى تثبيط الإجهاد التأكسدي والالتهاب وتحسين AA. تم إعداد هذا المخطط بواسطة المؤلفين باستخدام BioGDP.com، ولا توجد أي مخاوف تتعلق بحقوق الطبع والنشر. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| الجينات | الأنواع | التسلسلات (5' - 3') | الطول (bp) |
| FOXO3a | فأر | أمامي: GCAAGCCGTGTACTGTGGA | 116 |
| عكسي: CGGGAGCGCGATGTTATCC | |||
| FOXO3a | إنسان | أمامي: CGGACAAACGGCTCACTCT | 150 |
| عكسي: GGACCCGCATGAATCGACTAT | |||
| SOD | إنسان | أمامي: AAAGATGGTGTGGCCGATGT | 167 |
| عكسي: CAAGCCAAACGACTTCCAGC | |||
| CAT | إنسان | أمامي: CTATCCTGACACTCACCGCC | 129 |
| عكسي: CCACCCTGATTGTCCTGCAT | |||
| GPX-4 | إنسان | أمامي: GCAAGGGCATCCTGGGAAAT | 84 |
| عكسي: GTTCTTGTCGATGAGGAACTGTG | |||
| β-Actin | إنسان | أمامي: AATCTGGCACCACACCTTCTACAA | 172 |
| عكسي: GGATAGCACAGCCTGGATAGCAA | |||
| β-Actin | فأر | أمامي: GTGCTATGTTGCTCTAGACTTCG | 174 |
| عكسي: ATGCCACAGGATTCCATACC |
الجدول 1: معلومات تسلسل الجينات الخاصة بتقنية qRT-PCR.البادئات المستخدمة في تقنية qRT-PCR.
| الجينات | الأنواع | التسلسلات (5' - 3') | الطول (زوج قاعدي) |
| سوبر أكسيد ديسميوتيز (SOD) | إنسان | الأمامي: TGCCAGAAGAGGGACAGAACAGG | 173 |
| العكس: ATCCGCCCACAGACACGAGAG | |||
| كاتالاز (CAT) | بشري | أمام: GGGAAGCAGATTTCTCCAGTG | 141 |
| العكس: GGGTGTTGATTTCCTCCTTTACC | |||
| GPX-4 | بشري | الأمامي: TGGCACATTTTGGGGTTGGAAC | 103 |
| عكسي: TGAACGCTCCTCCTCCTTAAACG |
الجدول 2: معلومات تسلسل الجينات لتقنية ChIP-PCR. البادئات المستخدمة في تقنية ChIP-PCR.
المناقشة
لا يمتلك AMG في حد ذاته سمية مباشرة، ولكنه يتحلل بواسطة الإنزيمات الميكروبية المعوية أو حمض المعدة، مما يؤدي إلى توليد وتحرير سيانيد الهيدروجين شديد السمية49. بعد ذلك، يتم امتصاص سيانيد الهيدروجين بسرعة عبر الجهاز الهضمي إلى مجرى الدم وينتشر في أنسجة الجسم، مما يسبب نقص الأكسجة في أنسجة الجهاز العصبي، والجهاز القلب الوعائي، والجهاز التنفسي50. ومن حيث الآلية، يتحد سيانيد الهيدروجين مع أيونات الحديد في سيتوكروم أوكسيداز، مما يؤدي إلى غلق سلسلة التنفس الخلوي، وهو ما يسبب نقص أكسجة الأنسجة واضطرابات في التمثيل الغذائي الخلوي، ويحفز حدوث تسمم حاد51. وتشمل الأعراض السامة الصداع، والغثيان، والقيء، وصعوبات في التنفس49,52. وفي الحالات الشديدة، يمكن أن يؤدي ذلك إلى فشل تنفسي والوفاة49,52. لذا، فإن ضمان نطاق الجرعة الآمنة من AMG يعد شرطًا أساسيًا لدراسة تأثيراته الفارماكولوجية. وفي هذه الدراسة، أكد المؤلفون أولاً من خلال الفحص الباثولوجي أن الجرعات المستخدمة (60 و 90 و 120 mg/kg) لم تسبب سمية كبدية أو كلوية في فئران C3H/HeJ الطبيعية، وهو ما يشكل الأساس لمزيد من الأبحاث حول علاج الثعلبة البقعية باستخدام AMG.
يعمل IFN-γ كمحرك أساسي للالتهاب أثناء تطور مرض AA، حيث يتم إفرازه بشكل رئيسي بواسطة خلايا T النشطة من نوع CD4+/CD8+53,54,55. وهو يؤدي إلى تعطيل الامتياز المناعي للبصيلات الشعرية (على سبيل المثال من خلال تثبيط التعبير المنخفض لـ MHC I)، مما يحفز خلايا T ذات التفاعل الذاتي على مهاجمة الخلايا الميلانية في بصيلات الشعر، وهو ما يؤدي إلى حدوث تفجي في الخلايا الأم للشعر وتكرتن غير طبيعي في بصلة الشعر56,57. وقد أظهرت التجارب الحيوانية أن الفئران التي تفتقر إلى جين IFN-γ تظهر مقاومة تجاه AA58. ويمكن لـ IL-6 وIL-15 تعزيز الاستجابات المناعية من نوع Th1 عن طريق تنشيط شلال نقل الإشارة JAK/STAT وتعزيز إفراز IFN-γ 59. علاوة على ذلك، يمكن لـ IL-15 تحفيز تكاثر خلايا NK وخلايا T، مما يؤدي إلى تفاقم الارتشاح الالتهابي المحيط ببنى بصيلات الشعر60. تتهرب بصيلات الشعر الطبيعية من المراقبة المناعية من خلال التعبير المنخفض لـ MHC I، بينما يرتفع تعبير MHC I بشكل غير طبيعي لدى مرضى AA، مما يجعل الخلايا الميلانية في بصيلات الشعر هدفاً لهجوم خلايا T61. وفي هذه الدراسة، لاحظ المؤلفون أن العلاج بـ AMG خفض بشكل كبير مستويات بروتينات MHC I وIL-15 في جلد فئران C3H/HeJ. كما أكدت التجارب الحيوانية السابقة أن AMG يمكن أن يثبط مستويات IFN-γ وIL-6 في فئران AA38. وفي حالة إصابة HPEMs المستحثة بـ H2O2، تم تقييد MHC I، بالإضافة إلى السيتوكينات المحفزة للالتهاب بما في ذلك IFN-γ وIL-6 وIL-15، بشكل ملحوظ بعد العلاج بـ AMG. وتشير هذه البيانات إلى أن قدرة AMG على علاج AA قد تكون مرتبطة بالحفاظ على التوازن بين المناعة والالتهاب.
يلعب عدم التوازن بين نظام الإنزيمات المضادة للأكسدة (SOD و CAT و GPX-4) ومؤشرات بيروكسيد الدهون MDA و ROS دوراً حاسماً في إمراضية AA62. يعمل SOD على تقليل الإجهاد التأكسدي عن طريق تحفيز تحويل O2·⁻ إلى H2O2، بينما يقوم CAT و GPX-4 بتفكيك H2O2 بشكل أكبر إلى H2O، مما يمنع تراكم ROS. وتشير الأدلة إلى أن الزيادة المفرطة في ROS يمكن أن تحفز بيروكسيد الدهون، مما يؤدي إلى ارتفاع مستويات MDA وإلحاق الضرر المباشر بخلايا بصيلات الشعر63. وفي المرضى المصابين بـ AA، تنخفض قدرة التخلص من ROS في بصيلات الشعر، ويؤدي تراكم MDA إلى تفاقم الموت الخلوي المبرمج لخلايا حليمة الشعر، مما يتسبب في دخول بصيلات الشعر في مرحلة الراحة قبل الأوان63. علاوة على ذلك، قد يؤدي الإجهاد التأكسدي إلى تعزيز إفراز العامل المحفز للالتهابات IFN-γ، مما يزيد من تفاقم الهجوم المناعي وتدهور بصيلات الشعر64. في هذه الدراسة، أوضح الباحثون أن تدخل AMG قلل من التعبير المفرط لـ ROS في جلد الفئران المصابة بـ AA، وكذلك قلل من إصابة خلايا HPEM المستحثة بواسطة H2O2. وفي الوقت ذاته، أظهرت الاستقصاءات التجريبية داخل الجسم (in vivo) وخارج الجسم (ex vivo) أن علاج AMG عزز بشكل كبير المؤشرات المضادة للأكسدة (SOD و CAT و GPX-4)، بينما أضعف المؤشر المؤكسد MDA. وتشير هذه الأدلة إلى أن الحفاظ على توازن الإجهاد التأكسدي هو مساهمة AMG في علاج AA. وبالنظر إلى أن ضعف نشاط GPX-4 قد يؤدي إلى توليد MDA غير منضبط، فقد يحفز ذلك عملية الموت الحديدي (ferroptosis). كما يمكن لهذه العمليات الجزيئية أن تساهم في تفاقم AA وتعمل كآلية محتملة لعلاج AMG. وكل هذه النتائج تتطلب مزيداً من التحقق التجريبي في المستقبل.
باعتباره عاملاً رئيسياً في النسخ، قد يشارك FOXO3a في إمراضية فقر الدم اللاتنسجي من خلال مسارات الإجهاد التأكسدي والتنظيم المناعي على حد سواء.65ويمكنه الانتقال إلى النواة في حالات الإجهاد التأكسدي، مما يؤدي إلى زيادة تنظيم الإنزيمات المضادة للأكسدة الرئيسية مثل SOD وCAT لإزالة أنواع الأكسجين التفاعلية (ROS) الزائدة وتقليل الضرر التأكسدي الذي يلحق بأنسجة فروة الرأس. ومن خلال تخفيف العبء التأكسدي الموضعي، يمكن لـ FOXO3a تثبيت الامتياز المناعي لبصيلات الشعر وكبح الهجوم المناعي الذاتي الذي يؤدي إلى تساقط الشعر غير الندبي. وفيما يتعلق بتنظيم الإجهاد التأكسدي، يمكن لتنشيط FOXO3a زيادة التعبير عن الإنزيمات المضادة للأكسدة مثل SOD وCAT وتثبيط تراكم ROS.65ومع ذلك، يمكن أن يؤدي ضعف وظيفة FOXO3a إلى تحفيز زيادة توليد MDA، وهو منتج رئيسي لبيروكسيد الدهون، مما يؤدي بالتالي إلى تفاقم الموت الخلوي المبرمج 66. وعلى مستوى التنظيم المناعي، يحفز FOXO3a الهجمات المناعية الذاتية من خلال تنظيم المستضدات المقيدة بمعقد التوافق النسيجي الكبير من النوع الأول (MHC I).67أفادت هذه الدراسة أن مادة AMG أدت إلى زيادة مستويات بروتين وجين FOXO3a بشكل كبير في أنسجة الجلد لفئران C3H/HeJ وفي خلايا HPEMs المحفزة بـ H2O2. علاوة على ذلك، قللت مادة AMG من مستويات أنواع الأكسجين التفاعلية (ROS) وموت الخلايا المبرمج، بينما رفعت تعبير FOXO3a ومستويات SOD وCAT وGPX-4 التي ينظمها FOXO3a في خلايا HPEM ذات التعبير المنخفض لـ FOXO3a. تشير هذه النتائج مجتمعة إلى أن التأثير العلاجي لـ AMG على AA يرتبط ارتباطاً وثيقاً بالتوازن التنظيمي الذي يتوسطه FOXO3a بين الإجهاد التأكسدي والموت الخلوي المبرمج. وبالنظر إلى العلاقة السببية لـ FOXO3a الذي يتوسطه AMG في تحسين AA، فمن الضروري إجراء عملية زيادة تعبير FOXO3a أو تثبيطه دوائياً تحت تأثير تدخل AMG في الدراسات المستقبلية. بالإضافة إلى ذلك، لا يزال من الضروري استقصاء ما إذا كان FOXO3a الذي يتوسطه AMG يمكنه تخفيف الإجهاد التأكسدي وتعديل الاستجابات الالتهابية لحماية الخلايا الجذعية لبصيلات الشعر من التلف الناجم عن ROS والتدمير بوساطة مناعية. وهناك نقطة أخرى جديرة بالملاحظة وهي ما إذا كان AMG يمارس تأثيره المضاد للأكسدة عن طريق مواجهة سمية H مباشرة₂O₂ أو من خلال تنظيم نقل الإشارات داخل الخلايا، وهي تظل مسألة غير محلولة في هذا البحث.
في الختام، أكدت هذه الدراسة أولاً أن AMG لم يكن ساماً للكبد والكليتين عند الجرعات المختبرة. علاوة على ذلك، تم إثبات أنه على المستوى الجزيئي قد يعزز AMG تعبير FOXO3a، مما يؤدي إلى تنشيط نسخ تعبيرات SOD وCAT وGPX-4، وتثبيط الاستجابات الالتهابية وعمليات الموت الخلوي المبرمج لعلاج AA (الشكل 10). ومع ذلك، لا تزال هناك بعض القيود الموجودة في هذه الدراسة والتي تحتاج إلى استكشاف وتوضيح في البحوث اللاحقة. أولاً، يعد توضيح السمية طويلة المدى والخصائص الحركية الدوائية لـ AMG في حيوانات AA بمثابة الأساس والمتطلب المسبق للبحث المتعمق في تأثيراته الفارماكولوجية وآلياته الجزيئية. ثانياً، لا تزال التأثيرات الفارماكولوجية لـ AMG في علاج AA تتطلب تأكيداً من خلال دراسات واسعة النطاق في نماذج حيوانية متعددة وتجارب سريرية. أما فيما يتعلق بالآلية الجزيئية، فلا يزال من الضروري إجراء تجارب الإنقاذ للتأكيد بشكل أكبر ما إذا كان FOXO3a هو الذي يتوسط التأثير الفارماكولوجي لـ AMG. كما يتطلب الأمر مزيداً من الاستكشاف لتحديد ما إذا كان ذلك ناتجاً عن النشاط المباشر المضاد للأكسدة لـ AMG أو التأثير المضاد للأكسدة الذي يمارسه FOXO3a بوساطة AMG.
الإفصاحات
يصرح المؤلفون بعدم وجود أي تضارب في المصالح.
مساهمات المؤلفين:
شون هي: الاستقصاء، والمنهجية، والكتابة - المسودة الأصلية. جينغ سونغ ليو، وجياوي وانغ، وزي داي: تنظيم البيانات. يوغانغ غونغ، ووي لو، وشياو وي شا: البرمجيات، والتصور البصري، والتحقق من الصحة. شون هي: التصور المفاهيمي، والكتابة - المراجعة. &؛ التحرير، والحصول على التمويل، والإشراف.
شكر وتقدير
تم دعم هذا العمل من قبل لجنة الرعاية الصحية للكوادر بمقاطعة سيتشوان (2024-221).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| 5×مزيج رئيسي شامل (مع مجموعة AccuRT لإزالة الحمض النووي الريبوزي منقوص الأكسجين الجينومي) | شركة .Applied Biological Materials Inc، جيانغسو، الصين | G492 | |
| β-جسم مضاد للأكتين | شركة Affinity Biosciences المحدودة، ووهان، الصين | AF7018 | |
| أميغدالين | شركة Chengdu Herbpurify المحدودة، تشنغدو، الصين | K-001-181216 | |
| جسم مضاد للكاتالاز | Proteintech، ووهان، الصين | 66765-1-Ig | |
| طقم فحص الكاتاليز | إلاب ساينس (Elabscience)، ووهان، الصين | E-BC-K031-M | |
| فئران C3H/HeJ | شركة Chengdu Yaokang Biotechnology المحدودة، تشنغدو، الصين | N000190 | |
| طقم مقايسة الترسيب المناعي للكروماتين (ChIP) | Beyotime Biotechnology، شنغهاي، الصين | P2078 | |
| وسط استزراع 254 | Gibco, Thermo Fisher Scientific, أمريكا | M-254-500 | |
| كاشف صبغ DAPI | Servicebio، ووهان، الصين | G1012 | |
| ديسبيز II | شركة شنغهاي يواني بيوتكنولوجي المحدودة (Shanghai Yuanye Bio-Technology Co., Ltd.)، شنغهاي، الصين | S25046 | |
| EvaGreen Express 2×المزيج الرئيسي لتفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي - بدون صبغة | شركة Applied Biological Materials Inc.، جيانغسو، الصين | MasterMix-ES | |
| صبغة Fast Black HB | شركة Sangon Biotech المحدودة، شنغهاي، الصين | A602008-0025 | |
| مصل جنين البقر | كل الأخضر | 13011-8611 | |
| المجهر الفلوري | SOPTOP | CX40 | |
| جسم مضاد لـ FOXO3a | Proteintech، ووهان، الصين | 10849-1-AP | |
| الميكروتوم التجميدي | ثيرمو (Thermo) | المقطع المجمد E | |
| جسم مضاد لإنزيم جلوتاثيون بيروكسيداز 4 | Proteintech، ووهان، الصين | 67763-1-Ig | |
| طقم فحص غلوتاتيون بيروكسيداز 4 | Elabscience، ووهان، الصين | E-BC-K883-M | |
| Image-pro plus 6.0 | Media Cybernetics, Inc.، روكفيل، ماريلاند، الولايات المتحدة الأمريكية | —— | |
| كريم إيميكويمود | شركة سيتشوان مينغشين للصناعات الدوائية المحدودة، تشنغدو، الصين | H20030129 | |
| جسم مضاد للإنترفيرون غاما | Proteintech، ووهان، الصين | 15365-1-AP | |
| طقم فحص إنترفيرون غاما | Elabscience، ووهان، الصين | E-EL-H0108 و E-EL-M0048 | |
| جسم مضاد لإنترلوكين 6 | Proteintech، ووهان، الصين | 21865-1-AP | |
| طقم تحليل إنترلوكين 6 | Elabscience، ووهان، الصين | E-EL-H6156 و E-EL-M0044 | |
| جسم مضاد لإنترلوكين 15 | شركة Affinity Biosciences Ltd.، ووهان، الصين | DF2521 | |
| طقم تحليل إنترلوكين 15 | Elabscience، ووهان، الصين | E-EL-H0222 وE-EL-M0728 | |
| طقم تحليل المالوندِيألدهيد | إلاب ساينس (Elabscience)، ووهان، الصين | E-EL-0060 | |
| جسم مضاد لمعقد التوافق النسيجي الكبير (MHC antibody) | Affinity Biosciences Ltd.، ووهان، الصين | DF8558 | |
| المجهر الضوئي | ZEISS | Primo Star | |
| قاطعة البارافين | Thermo Scientific | HM325 | |
| برمجيات الفحص الباثولوجي | 3DHISTECH (المجر) | عارض الشرائح 2.5.0 | |
| محلول البنسلين-سينثرويد | Biosharp، بكين، الصين | BL505A | |
| الأجسام المضادة من النوع IgG للأرانب | شركة Beyotime Biotechnology، شنغهاي، الصين | A7016 | |
| طقم فحص أنواع الأكسجين التفاعلية (ROS assay kit) | بيوتايم بيوتكنولوجي (Beyotime Biotechnology)، شنغهاي، الصين | S0033M | |
| جسم مضاد لإنزيم سوبر أكسيد ديسميوتاز 1 | Proteintech، ووهان، الصين | 10269-1-AP | |
| جهاز طمر الأنسجة | شركة ووهان جونجيه للإلكترونيات المحدودة، ووهان الصين | JB-P5 | |
| جهاز استخلاص السوائل من الأنسجة بالضغط الهيدروليكي | Thermo scientific | STP420 ES | |
| طقم استخلاص الحمض النووي الريبوزي الكلي (Total RNA isolation kit) | Foregene، تشنغدو، الصين | RE-03014 | |
| طقم قياس إجمالي سوبر أكسيد ديسميوتيز* | Elabscience، ووهان، الصين | E-BC-K020-M | |
| فازلين أبيض | شركة شنغهاي ألادين للتكنولوجيا البيوكيميائية المحدودة، شنغهاي، الصين | P434227 |
المراجع
- Li XQ, et al. Burden of alopecia areata in China, 1990-2021: Global Burden of Disease Study 2021. Chin Med J (Engl). 2025;138:318-324.
- Rodríguez-Tamez G, Maskan-Bermudez N, Tosti A. Alopecia areata incognita: Current evidence. Dermatol Ther (Heidelb). 2025;15:635-645.
- Zhou J, et al. Global burden of alopecia areata and associated diseases: A trend analysis from 1990 to 2021. J Cosmet Dermatol. 2025;24:e70076.
- Jeon JJ, Lee S, Kim MS, Kim YS, Hong SH, Yon DK, et al. The burden of alopecia areata among United States, 2000-2021: A systematic analysis for the global burden of disease study 2021. J Am Acad Dermatol. 2025;S0190-9622(25)02673-8.
- Todorova L, Kluger N. Alopecia: A Google trends analysis of the past 5 years (2018-2023). Skin Appendage Disord. 2025;11:282-286.
- Pratt CH, King LEJr, Messenger AG, Christiano AM, Sundberg JP. Alopecia areata. Nat Rev Dis Primers. 2017;3:17011.
- Mistry J, Sibbald C. Clinical presentations and comorbidities of pediatric alopecia areata. Pediatr Dermatol. 2025;42 Suppl 1:5-11.
- Kuty-Pachecka M. Psychological and psychopathological factors in alopecia areata. Psychiatr Pol. 2015;49:955-964.
- Marahatta S, Agrawal S, Adhikari BR. Psychological impact of alopecia areata. Dermatol Res Pract. 2020;2020:8879343.
- Dainichi T, Iwata M, Kaku Y. Alopecia areata: What's new in the epidemiology, comorbidities, and pathogenesis J Dermatol Sci. 2023;112:120-127.
- Lintzeri DA, Constantinou A, Hillmann K, Ghoreschi K, Vogt A, Blume-Peytavi U. Alopecia areata - Current understanding and management. J Dtsch Dermatol Ges. 2022;20:59-90.
- Singh R, Kumar P, Kumar D, Aggarwal N, Chopra H, Kumar V. Alopecia areata: Review of epidemiology, pathophysiology, current treatments and nanoparticulate delivery system. Ther Deliv. 2024;15:193-210.
- Rizzetto G, De Simoni E, Gioacchini H, Molinelli E, Offidani A, Simonetti O. Fractionated CO2 laser in combination with topical tacrolimus for chronic alopecia areata: A case series study. Life (Basel). 2024;14:1128.
- Gasques L, de Brito FF, Zobiole R, Bortolini L, Assumpção VCC, Carvalho CL. Corticosteroid atrophy plaque on the scalp treated with 5-fluourouracil and bleomycin infusion in the MMP technique. Skin Appendage Disord. 2024;10:425-428.
- Lee D, et al. Serum levels of IL-18 and sIL-2R in patients with alopecia areata receiving combined therapy with oral cyclosporine and steroids. Exp Dermatol. 2010;19:145-147.
- Mlacker S, et al. A review on laser and light-based therapies for alopecia areata. J Cosmet Laser Ther. 2017;19:93-99.
- Jafari MA, Bazgir G, Hosseini-Baharanchi FS, Jafarzadeh A, Goodarzi A. Efficacy and safety of laser therapy and phototherapy in cicatricial and noncicatricial alopecia: A systematic review study. Health Sci Rep. 2024;7:e70180.
- Civaş E, Aksoy B, Aksoy HM, Eski M, Yucel K. Hair transplantation for therapy-resistant alopecia areata of the eyebrows: is it the right choice J Dermatol. 2010;37:823-826.
- King BA, Craiglow BG. Janus kinase inhibitors for alopecia areata. J Am Acad Dermatol. 2023;89:S29-S32.
- Chim I, Ghiya R, Sinclair RD, Eisman S. Novel investigational drugs for alopecia areata and future perspectives. Expert Opin Investig Drugs. 2024;33:441-449.
- Valdez-Zertuche JA, Ramírez-Marín HA, Tosti A. Efficacy, safety and tolerability of drugs for alopecia: A comprehensive review. Expert Opin Drug Metab Toxicol. 2025;21:347-371.
- Liu M, et al. Janus kinase inhibitors for alopecia areata: A systematic review and meta-analysis. JAMA Netw Open. 2023;6:e2320351.
- Sohn KC, et al. Effect of thioredoxin reductase 1 on glucocorticoid receptor activity in human outer root sheath cells. Biochem Biophys Res Commun. 2007;356:810-815.
- Sun C, Ding HH, Zhang L, Wang JL, Su MY. Co-regulatory mechanisms and potential markers of oxidative stress-related genes in vitiligo and alopecia areata. Skin Res Technol. 2024;30:e70001.
- Perlmutter J, et al. The role of reactive oxygen species in the pathogenesis of alopecia areata: A systematic review and meta-analysis. Skin Pharmacol Physiol. 2025;38:59-67.
- Xie B, Sun JY, Song XZ. Hair follicle melanocytes initiate autoimmunity in alopecia areata: A trigger point. Clin Rev Allergy Immunol. 2022;63:417-430.
- Shin JM, et al. The crosstalk between PTEN-induced kinase 1-mediated mitophagy and the inflammasome in the pathogenesis of alopecia areata. Exp Dermatol. 2024;33:e14844.
- Mustafa AI, Khashaba RA, Fawzy E, Baghdady SMA, Rezk SM. Cross talk between oxidative stress and inflammation in alopecia areata. J Cosmet Dermatol. 2021;20:2305-2310.
- Cohen JN, et al. Regulatory T cells in skin mediate immune privilege of the hair follicle stem cell niche. Sci Immunol. 2024;9:eadh0152.
- Kinoshita-Ise M, Martinez-Cabriales SA, Alhusayen R. Chronological association between alopecia areata and autoimmune thyroid diseases: A systematic review and meta-analysis. J Dermatol. 2019;46:702-709.
- Chen DY, Yang XY, Wang HX, Fan WL, He YQ. Molecular mechanism of polygonum multiflorum in the treatment of androgenic alopecia: based on bioinformatics and molecular docking method. Diagnosis and Therapy Journal of Dermato-Venereology 2022;29:101–108.
- Iwasa K, et al. Long term administration of loquat leaves and their major component, ursolic acid, attenuated endogenous amyloid-β burden and memory impairment. Sci Rep. 2023;13:16770.
- Makovi CM, Parker CH, Zhang K. Determination of amygdalin in apricot kernels and almonds Using LC-MS/MS. J AOAC Int. 2023;106:457-463.
- Li XJ, et al. Identifying the active components and mechanisms of Persicae Semen in treating androgenetic alopecia: Insights from network pharmacology and experimental evaluations. J Ethnopharmacol. 2025;347:119755.
- Wang Q, et al. Amygdalin alleviates psoriasis-like lesions by improving skin barrier function. Arch Dermatol Res. 2025;317:115.
- Li SY, et al. Effects of amygdalin on ferroptosis and oxidative stress in diabetic retinopathy progression via the NRF2/ARE signaling pathway. Exp Eye Res. 2023;234:109569.
- Kimura K, Liu YH, Hsieh CL. Amygdalin's neuroprotective effects on acute ischemic stroke in rats. J Ethnopharmacol. 2025;345:119621.
- He X, et al. Amygdalin ameliorates alopecia areata on C3H/HeJ mice by inhibiting inflammation through JAK2/STAT3 pathway. J Ethnopharmacol. 2024;331:118317.
- He X, et al. The antiinflammatory effects of Xuefu Zhuyu decoction on C3H/HeJ mice with alopecia areata. Phytomedicine. 2021;81:153423.
- Ma LP, et al. Melatonin inhibits senescence-associated melanin pigmentation through the p53-TYR pathway in human primary melanocytes and the skin of C57BL/6 J mice after UVB irradiation. J Mol Med (Berl). 2023;101:581-593.
- Hou Y, et al. Longzhibu disease and its therapeutic effects by traditional Tibetan medicine: Ershi-wei Chenxiang pills. J Ethnopharmacol. 2020;249:112426.
- Hou Y, Fan FH, Xie N, Zhang Y, Wang XB, Meng XL. Rhodiola crenulata alleviates hypobaric hypoxia-induced brain injury by maintaining BBB integrity and balancing energy metabolism dysfunction. Phytomedicine. 2024;128:155529.
- Hou Y, et al. Salidroside intensifies mitochondrial function of CoCl2-damaged HT22 cells by stimulating PI3K-AKT-MAPK signaling pathway. Phytomedicine. 2023;109:154568.
- Fan FH, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule’s protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Wang XB, et al. Mechanistic insights into salidroside's mitochondrial protection via AMPK/Sirt1/HIF-1α pathway in hypoxic HT22 cells. JoVE. 2025;218:e66923.
- Wang XB, et al. Rhodiola crenulata attenuates apoptosis and mitochondrial energy metabolism disorder in rats with hypobaric hypoxia-induced brain injury by regulating the HIF-1α/microRNA 210/ISCU1/2(COX10) signaling pathway. J Ethnopharmacol. 2019;241:111801.
- Fan SJ, et al. PRMT5 encourages cell migration and metastasis of tongue squamous cell carcinoma through methylating ΔNp63α. Cell Death Differ. 2026; 33:465-479.
- Zhao Y, et al. Integrated analysis reveals that EGR1 promotes epithelial IL33 production in T2 asthma. J Transl Med. 2025;23:203.
- He XY, Wu LJ, Wang WX, Xie PJ, Chen YH, Wang F. Amygdalin - A pharmacological and toxicological review. J Ethnopharmacol. 2020;254:112717.
- Alan-Albayrak E, Simonsen U. Cyanide beyond toxicity: A systematic review of its effects on vascular function. Basic Clin Pharmacol Toxicol. 2025;137:e70124.
- Lachowicz JI, Alexander J, Aaseth JO. Cyanide and cyanogenic compounds-toxicity, molecular targets, and therapeutic agents. Biomolecules. 2024;14:1420.
- Jaszczak-Wilke E, Polkowska Ż, Koprowski M, Owsianik K, Mitchell AE, Bałczewski P. Amygdalin: Toxicity, anticancer activity and analytical procedures for its determination in plant seeds. Molecules. 2021;26:2253.
- Deeths MJ, Endrizzi BT, Irvin ML, Steiner LP, Ericson ME, Hordinsky MK. Phenotypic analysis of T-cells in extensive alopecia areata scalp suggests partial tolerance. J Invest Dermatol. 2006;126:366-373.
- Garzorz N, et al. Dissecting susceptibility from exogenous triggers: the model of alopecia areata and associated inflammatory skin diseases. J Eur Acad Dermatol Venereol. 2015;29:2429-2435.
- Belpaire A, Demeyer A, Van Caelenberg E, van Geel N, Speeckaert R. The AhR pathway is dysregulated in alopecia areata. J Transl Autoimmun. 2025;10:100282.
- Gilhar A, Schrum AG, Etzioni A, Waldmann H, Paus R. Alopecia areata: Animal models illuminate autoimmune pathogenesis and novel immunotherapeutic strategies. Autoimmun Rev. 2016;15:726-735.
- Oelert T, Gilhar A, Paus R. T-cell "induced-self" MHC class I/peptide complexes may enable "de novo" tolerance induction to neo-antigens occurring outside of the thymus: Lessons from the hair follicle. Exp Dermatol. 2017;26:529-531.
- Freyschmidt-Paul P, et al. Interferon-γ-deficient mice are resistant to the development of alopecia areata. Br J Dermatol. 2006;155:515-521.
- Lensing M, Jabbari A. An overview of JAK/STAT pathways and JAK inhibition in alopecia areata. Front Immunol. 2022;13:955035.
- Suzuki T, et al. Interleukin-15 is a hair follicle immune privilege guardian. J Autoimmun. 2024;145:103217.
- Fitzhugh MH, Hansen JG, Jabbari A, Berrebi KG. Pathophysiology of Alopecia Areata in the Pediatric Patient. Pediatr Dermatol. 2025;42:24-30.
- Ma YQ, Sun Z, Li YM, Xu H. Oxidative stress and alopecia areata. Front Med (Lausanne). 2023;10:1181572.
- Bakry OA, Elshazly RM, Shoeib MA, Gooda A. Oxidative stress in alopecia areata: A case-control study. Am J Clin Dermatol. 2014;15:57-64.
- Peterle L, Sanfilippo S, Borgia F, Cicero N, Gangemi S. Alopecia areata: A review of the role of oxidative stress, possible biomarkers, and potential novel therapeutic approaches. Antioxidants (Basel). 2023;12:135.
- Yang X, et al. Exosomes derived from platelet-rich plasma promote hair regeneration by regulating the SIRT1/FoxO3a pathway to alleviate oxidative stress. Regen Ther. 2025;30:710-718.
- Xu SC, Huang P, Yang JH, Du HX, Wan HT, He Y. Calycosin alleviates cerebral ischemia/reperfusion injury by repressing autophagy via STAT3/FOXO3a signaling pathway. Phytomedicine. 2023;115:154845.
- Tang QY, et al. Orlistat facilitates immunotherapy via AKT-FOXO3a-FOXM1-mediated PD-L1 suppression. J Immunother Cancer. 2025;13:e008923.