يتم وصف طريقة مفصلة لتقييم الأنماط الظاهرية الطافرة للجينات محل الاهتمام وتحديد أدوارها في اندماج الخلايا العضلية الأولية باستخدام أجنة Drosophila. يتيح هذا النهج توصيفاً منهجياً لوظيفة الجينات أثناء تطور العضلات الجنينية.
مقالة منهجية
التحليل الجيني والمظهري والكمي لاندماج الخلايا العضلية في أجنة Drosophila
في هذه المقالة
ملخص
الملخص
يعد اندماج الخلايا العضلية أحادية النواة (mononucleated myoblasts) لتكوين مدمجات متعددة النوى (multinucleated syncytia) عملية أساسية في تطور العضلات الهيكلية. وتعتبر ذبابة Drosophila melanogaster نموذجاً قوياً وقابلاً للتداول جينياً لتقييم وظيفة الجينات المرشحة المشاركة في هذه العملية بسرعة وكفاءة. نصف هنا بروتوكولاً شاملاً يتضمن تعليمات خطوة بخطوة لتحليل النمط الظاهري لاندماج الخلايا العضلية في أجنة Drosophila . تتضمن هذه الطريقة اختيار السلالات الطافرة للجين المرشح، وجمع الأجنة وتثبيتها، والصبغ المناعي للعينة الكاملة (whole-mount immunostaining)، وتحديد المراحل التطورية، والتصوير المجهري البؤري (confocal imaging)، والتحليل المظهري. يُستخدم صبغ السلسلة الثقيلة للميوزين (MHC) لتصور المورفولوجيا العامة للعضلات وتحديد الخلايا العضلية أحادية النواة غير المندمجة. وبالتوازي مع ذلك، يعمل صبغ Even-skipped (Eve) على وسم النوى داخل ليف عضلي معين، مما يسمح بالتحليل الكمي لمدى الاندماج عن طريق عد النوى المدمجة في ذلك الليف. وبشكل عام، يُمكّن هذا البروتوكول القراء من تقييم الأنماط الظاهرية الطافرة لأي جينات ذات أهمية وتقييم أدوارها في اندماج الخلايا العضلية. ويوفر هذا النهج إطاراً قوياً لتحديد وتوصيف المنظمات الجديدة لاندماج الخلايا العضلية.
المقدمة
تعد العضلات الهيكلية النسيج الأكثر وفرة في جسم الإنسان، حيث تشكل أكثر من 30% من إجمالي وزن الجسم. وخلال التطور الجنيني، تتولد ألياف العضلات الهيكلية من خلال اندماج خلايا عضلية أحادية النواة، تُعرف باسم الأرومات العضلية (myoblasts)، لتكوين ألياف عضلية مدمجة متعددة النوى1,2. وتعتبر هذه العملية ضرورية لتكوين العضلات ونموها ووظيفتها بشكل سليم، ويرتبط خللها بالعديد من الاضطرابات العضلية3,4. وبشكل مشابه للعضلات الهيكلية في الفقاريات، فإن الألياف العضلية متعددة النوى التي تشكل عضلات جدار الجسم الجنيني واليرقي في ذبابة Drosophila melanogaster تتكون أيضاً من خلال اندماج الأرومات العضلية أحادية النواة5,6,7,8. وفي ذبابة Drosophila، يحدث الاندماج بين نوعين من الخلايا العضلية، وهما الخلايا العضلية المؤسسة والأرومات العضلية القادرة على الاندماج (FCMs)، وذلك عند المشبك الاندماجي غير المتماثل9,10,11,12,13. ومن المهم الإشارة إلى أن الأحداث الخلوية والآليات الجزيئية التي تحكم اندماج الأرومات العضلية محفوظة للغاية بين ذبابة Drosophila والفقاريات14,15,16، مما يجعل Drosophila كائناً نموذجياً قوياً لاستقصاء الأساس الجيني والخلوي لاندماج الأرومات العضلية.
كما يوفر نموذج Drosophila العديد من المزايا التجريبية. أولاً، تتيح دورة الحياة القصيرة لـ Drosophila (حوالي 10 أيام عند 25 °C) إجراء التزاوجات الجينية بسرعة وتوليد سلالات طافرة بكفاءة. ثانياً، تتميز أجنة Drosophila بصغر حجمها ونفاذيتها العالية للأجسام المضادة بعد التثبيت، مما يسمح بإجراء التلوين المناعي للعينة الكاملة والتصوير عالي الدقة لتطور العضلات دون الحاجة إلى تشريح الأنسجة. ثالثاً، يتبع تطور العضلات الجنينية في Drosophila نمطاً نمطياً للغاية، حيث يتواجد 30 ليفاً عضلياً في معظم أنصاف القطع البطنية. يتم تحديد كل ليف عضلي بواسطة خلية مؤسسة واحدة تندمج مع عدد محدد من FCMs (يتراوح من 3 إلى 30)17، مما يتيح تحليلاً كمياً وقابلاً للتكرار لاندماج الخلايا العضلية الأولية. وأخيراً، تتيح المجموعات المتاحة علنياً من الطفرات الجينية وسلالات النقص التي تحمل حذفاً كروموسومياً إجراء تحليلات سريعة لفقدان الوظيفة لجميع الجينات تقريباً دون الحاجة إلى توليد طفرات de novo التي تستغرق وقتاً طويلاً.
يتم تقديم بروتوكول مفصل لتقييم أنماط اندماج الخلايا العضلية الأولية (myoblast fusion) في أجنة Drosophila (الشكل 1). يتضمن البروتوكول استراتيجيات لاختيار الأليلات الطافرة المناسبة، وجمع الأجنة وتثبيتها، والتلوين المناعي الكامل (whole-mount immunostaining)، وتصوير الأجنة، والتحليل الكمي لأنماط الاندماج. وتوفر هذه الإجراءات مجتمعة سير عمل سريع وفعال للتحليل الجيني للجينات المرشحة المشاركة في اندماج الخلايا العضلية الأولية.
البروتوكول
1. اختيار سلالات طافرة للتحليل الجيني لاندماج الخلايا العضلية
- ابحث عن السلالات الطافرة للجين المستهدف في قاعدة بيانات FlyBase. افتح صفحة تقرير الجين المقابلة وراجع الأليلات الطافرة المدرجة تحت قسم "الأليلات، والاندراجات، والبنى، والانحرافات" (Alleles, Insertions, Constructs, and Aberrations).
- اختر الأليلات الصفرية (null) أو الأليلات ذات الفقد القوي في الوظيفة من خلال فحص الآفات الجزيئية المسجلة لكل أليل. أعطِ الأولوية للأليلات التي تحتوي على طفرات غير معبرة (nonsense mutations)، أو طفرات إزاحة الإطار (frameshift mutations)، أو عمليات حذف، أو اندراجات تؤدي إلى تعطيل وظيفة الجين.
- ضع الأليل الطافر المختار فوق كروموسوم موازن (balancer chromosome) يحمل علامة فلورية للتمييز بين الأجنة الطافرة متماثلة الزيجوت والأشقاء الذين يحملون الموازن. اختر الموازن الفلوري المناسب بناءً على الكروموسوم الذي يحمل الأليل الطافر (الجدول 1).
2. جمع وتثبيت أجنة Drosophila
- قم بتجهيز أكواب تجميع الأجنة عن طريق عمل ثقوب تهوية متعددة على جوانب وقيعان دوارق بلاستيكية سعة 100 mL باستخدام إبرة مقاس 25 G (الشكل 1).
- قم بتجهيز آغار عصير العنب عن طريق خلط 15 g من الآغار مع 400 mL من الماء المقطر (dH₂O) وتعقيمها بالأتوكليف عند 121 °C لمدة 21 min. اترك الآغار المصهور يبرد حتى يصبح دافئاً عند لمسه باليد.
- قم بتسخين 100 mL من عصير العنب بتركيز 100% حتى يصبح دافئاً عند لمسه باليد، ثم اخلطه جيداً مع الآغار المصهور. صب ما يقرب من 10 mL في كل طبق استزراع مقاس 60 mm، واترك الأطباق تتصلب في درجة حرارة الغرفة، ثم خزنها عند 4 °C.
- قم بتجهيز معجون خميرة طازج عن طريق خلط 10 g من الخميرة الجافة في 15 ml من dH₂O حتى يصبح المزيج ناعماً وقابلاً للفرد. ضع المعجون في مركز طبق آغار عصير العنب وقم بتدفئة الطبق مسبقاً إلى 25 °C (الشكل 1).
ملاحظة: خزن معجون الخميرة الجاهز عند 4 °C لمدة تصل إلى أسبوعين. - انقل الذباب البالغ بعمر 3−7 أيام، والتي تكون متغايرة الزيجوت للأليل الطافر وموازِن فلوري مناسب، إلى أكواب التجميع.
ملاحظة: استخدم ذباباً من النوع البري، مثل w1118، كمجموعات ضابطة. يكفي وجود 50−80 أنثى و 40−50 ذكراً في كوب تجميع واحد. - ضع طبق آغار عصير العنب المدفأ مسبقاً فوق كوب التجميع وثبته بأربطة مطاطية (الشكل 1). حضّن كوب التجميع عند 25 °C لمدة 12 h.
- انقر برفق على كوب التجميع لإسقاط الذباب واستبدل الطبق بطبق آخر طازج ومدفأ مسبقاً. كرر عملية استبدال الطبق كل 12 h لمدة يومين لتعويد الذباب.
ملاحظة: قم بتدفئة كل طبق مسبقاً إلى 25 °C قبل الاستخدام لأن وضع البيض يقل في الأطباق الباردة. - استبدل الطبق بطبق طازج ومدفأ مسبقاً بعد فترة التعويد التي استمرت يومين. اترك الذباب يضع البيض طوال الليل لمدة 14−15 h.
- املأ أنبوب طرد مركزي دقيق سعة 1.5 mL بمحلول 0.1% (v/v) Triton X-100 في ماء مقطر. اجمع الأجنة من الطبق باستخدام فرشاة رسم مغموسة مسبقاً في 0.1% Triton X-100، ثم انقلها إلى الأنبوب.
- رج الأنبوب بقوة لإعادة تعليق الأجنة وإزالة بقايا معجون الخميرة. اترك الأجنة تترسب، ثم اغسلها بمحلول 0.1% Triton X-100 ثلاث مرات على الأقل، أو حتى يصبح المحلول رائقاً (الشكل 1).
- أضف 1.5 mL من مبيّض منزلي بتركيز ~50% للحصول على تركيز نهائي من هيبوكلوريت الصوديوم يبلغ 2.85%. قم بالرج الدوراني (nutation) لمدة 3 min لإزالة الغشاء الخارجي (dechorionate) للأجنة.
ملاحظة: تجنب تعريض الأجنة للمبيّض لفترة طويلة، لأن الإزالة المفرطة للغشاء الخارجي قد تؤذي الأجنة وتؤثر سلباً على الصبغ المناعي اللاحق. - اترك الأجنة تترسب، وأزل المبيّض، واغسلها 3 مرات بمحلول 0.1% Triton X-100.
- أزل محلول الغسيل المتبقي وأضف 700 µL من فورمالدهيد بتركيز 3.7% في محلول ملحي منظم بالفوسفات (PBS) و 700 µL من الهيبتان.
تنبيه: تعامل مع الفورمالدهيد والهيبتان داخل خزانة طرد الغازات (fume hood) وتخلص منهما وفقاً لإجراءات السلامة الكيميائية المناسبة. - أغلق الأنبوب بإحكام ورجه بقوة لمدة 30 s. قم بالرج الدوراني للأجنة لمدة 30 min لإتمام عملية التثبيت.
- اترك الأجنة تتجمع عند الحد الفاصل بين طور الهيبتان العلوي والطور المائي السفلي (الشكل 1). أزل الطور المائي بعناية دون تحريك الأجنة.
- أضف ما يقرب من 700 µL من الميثانول ورجه بقوة لمدة 30 s لإزالة الغشاء المحي (devitellinize) عن الأجنة.
ملاحظة: الأجنة التي تم إزالة غشائها المحي بنجاح تغرق إلى قاع الأنبوب، بينما تبقى الأغشية المحية المنفصلة عند الحد الفاصل (الشكل 1).
تنبيه: تعامل مع الميثانول داخل خزانة طرد الغازات وتخلص منه وفقاً لإجراءات السلامة الكيميائية المناسبة. - أزل الهيبتان والميثانول مع إبقاء الأجنة مغطاة بحجم صغير من الميثانول. اغسل الأجنة مرتين بالميثانول.
- أعد ترطيب الأجنة عن طريق غسلها ثلاث مرات بمحلول PBST (0.1% Triton X-100 في PBS) لمدة 5 min لكل غسلة باستخدام جهاز الرج الدوراني. احمِ الأجنة من الضوء خلال هذه الخطوة وجميع الخطوات اللاحقة.
ملاحظة: حافظ على تغطية الأجنة بالمحلول بعد إزالة الغشاء المحي لمنع الجفاف والحفاظ على شكل الجنين. قلل من التعرض للضوء المحيط للحفاظ على البروتينات الفلورية والأجسام المضادة المقترنة بالفلوروفور.
3. إجراء الصبغ المناعي للكائن كاملاً
- أزل PBST واحضن الأجنة في 1.5 mL من PBSBT (0.5% BSA (w/v) و 5 mM NaN3 في PBST) لمدة ساعة واحدة على الأقل في درجة حرارة الغرفة باستخدام جهاز هزاز دوراني (nutator).
- اقطع طرف رأس الماصة لعمل فتحة أوسع وتقليل الضرر الميكانيكي أثناء نقل الأجنة.
- انقل الأجنة المحجوبة إلى أنبوب طرد مركزي دقيق سعة 0.5 mL وأزل محلول الحجب. أضف 200−300 µL من PBSBT الطازج المحتوي على جسم مضاد anti-MHC (بنسبة تخفيف 1:500)18 و/أو جسم مضاد anti-Eve (بتركيز 0.5 µg/mL).
- احضن الأجنة مع الأجسام المضادة الأولية طوال الليل عند درجة حرارة 4 °C باستخدام جهاز هزاز دوراني.
ملاحظة: قم بإجراء صبغ مشترك بـ anti-Eve للتحليل الكمي بعد تحديد النمط الظاهري لالتحام الخلايا العضلية. يمكن استخدام الجسم المضاد anti-MHC المشتق من الأرانب أو الجرذان لتصوير العضلات الجنينية لـ Drosophila. - أزل محلول الجسم المضاد الأولي واغسل الأجنة ثلاث مرات باستخدام PBST لمدة 10 min لكل غسلة باستخدام جهاز هزاز دوراني.
ملاحظة: خزّن محلول الجسم المضاد الأولي عند درجة حرارة 4 °C لإعادة استخدامه عند الاقتضاء. يمكن عادةً إعادة استخدام المحلول حتى ثلاث مرات خلال شهر واحد. - احضن الأجنة في 300 µL من PBSBT المحتوي على الأجسام المضادة الثانوية الفلورية المناسبة بتخفيف 1:500 لمدة 2 h في درجة حرارة الغرفة باستخدام جهاز هزاز دوراني.
- أزل محلول الجسم المضاد الثانوي واغسل الأجنة ثلاث مرات باستخدام PBST لمدة 10 min لكل غسلة.
- أزل غسلة PBST الأخيرة وأضف حوالي 80 µL من وسط التثبيت. انقل الأجنة إلى شريحة مجهرية، وضع غطاء الشريحة برفق فوق العينة، ثم أحكم إغلاق الحواف (الشكل 1).
ملاحظة: خزّن الشرائح المجهزة عند درجة حرارة 4 °C، بعيداً عن الضوء، وقم بتصويرها في أقرب وقت ممكن للحصول على أفضل إشارة فلورية.
4. تحديد المرحلة العمرية وتصوير الأجنة
- حدد أجنة المرحلة 15 المتأخرة من خلال المورفولوجيا المميزة للأمعاء المتوسطة والتي تأخذ شكل القلب19 تحت إضاءة المجال المضيء (brightfield).
ملاحظة: لا يمكن الكشف عن تعبير بروتين MHC في الأجنة في المرحلة 14 أو المراحل السابقة لها. أما في أجنة المرحلة 16، فإن الأمعاء المتوسطة التي تأخذ شكل القلب تخضع لعملية تضييق وتنقسم إلى أربع حجرات19. - حدد الأجنة الطافرة متماثلة الزيجوت (homozygous mutant) من خلال غياب العلامة الفلورية.
ملاحظة: الأجنة الطافرة متماثلة الزيجوت لا تحمل الموازن المسمى فلوريًا؛ وبالتالي، لا تعبر عن البروتين الفلوري. يتم تخطي هذه الخطوة بالنسبة للأجنة الضابطة من النوع البري (wild-type). - اختر الأجنة الموجهة جانبيًا لتصور كامل العضلات الجسدية المحددة باستخدام جسم مضاد anti-MHC.
ملاحظة: الأجنة الموجهة ظهريًا أو بطنيًا تكشف بشكل أساسي عن الجزء المقابل من العضلات. استخدم الأجنة الموجهة جانبيًا لتقييم عيوب اندماج الخلايا العضلية (myoblast fusion) بشكل شامل. - اضبط قدرة الليزر وكسب الكاشف (detector gain) للحصول على فلورة MHC واضحة دون تشبع الإشارة، وحافظ على هذه الإعدادات لجميع العينات ضمن كل تجربة. حدد الحدود العليا والسفلى لمجموعة الصور المتراصة (z-stack) لتشمل كامل عمق العضلات الجسدية.
- اضبط دقة الصورة على 1024 × 1024 بكسل، وفتحة الثقب (pinhole) على 1 Airy unit، ومتوسط الخط/الإطار على 1، وعامل التكبير على 1، وحافظ على هذه الإعدادات لجميع العينات ضمن كل تجربة. التقط صور z-stack بؤرية (confocal) على فواصل 1.0 µm باستخدام عدسة شيئية زيتية 40×.
- قم بتصوير ما يقرب من 6-10 أجنة لكل نمط جيني لتقييم مدى تكرار النمط الظاهري.
ملاحظة: التقط قناة علامة الموازن الفلورية بالتزامن مع قناة MHC عندما يتطلب الأمر تأكيد النمط الجيني الطافر متماثل الزيجوت.
5. تصوير عضلة DA1 لتقدير كمية الاندماج
- أجرِ صبغاً مشتركاً لـ MHC و Eve بعد تحديد عيب في اندماج الخلايا العضلية الأولية في الأجنة الموجهة جانبياً.
- اختر أجنة طافرة وأجنة ضابطة من المرحلة 15 موجهة ظهرياً من أجل التصوير.
ملاحظة: يتم التعبير عن البروتين Even-skipped (Eve) بشكل محدد في نوى العضلة الحادة الظهرية 1 (DA1)20. قم بقياس اندماج الخلايا العضلية الأولية عن طريق تحديد عدد نوى Eve الموجبة المدمجة في عضلة DA1. - اضبط معاملات التصوير للحصول على فلورة واضحة لـ MHC و Eve دون حدوث تشبع في الإشارة. حدد مجموعة صور z-stack تشمل العمق الكامل لعضلة DA1 بناءً على إشارة Eve.
- التقط صور z-stack مجهرية بؤرية (confocal) باستخدام معاملات التصوير الموضحة أعلاه. صور ما يقرب من 6-10 أجنة لكل نمط جيني من أجل قياس الاندماج.
6. تقدير كمية النوى وإجراء التحليل الإحصائي
- تحديد أنصاف القطع البطنية A1-A7 بناءً على أنماطها العضلية النمطية والمتكررة.
- تحديد النوى الموجبة لبروتين Eve داخل عضلة DA1 المصبوغة بـ MHC. فحص مكدس الصور المحوري (z-stack) كاملاً وعد جميع النوى الموجبة لـ Eve الموجودة في مستويات بؤرية مختلفة داخل كل عضلة DA1.
ملاحظة: يحتوي كل نصف قطعة بطنية على عضلة DA1 واحدة. وبناءً على ذلك، يتم عد جميع النوى الموجبة لـ Eve ضمن نصف قطعة معينة على أنها تابعة لعضلة DA1 المقابلة لها. - تحديد كمية نوى DA1 في نفس المجموعة من أنصاف القطع البطنية، مثل A2-A5، لكل جنين.
ملاحظة: على الرغم من أن عضلات DA1 من أنصاف القطع البطنية A1-A7 مناسبة للقياس الكمي، إلا أن تحليل جميع أنصاف القطع السبعة ليس ضرورياً. وبدلاً من ذلك، يتم قياس عدة أنصاف قطع لكل جنين، مثل A2-A5، وتحليل نفس المجموعة من أنصاف القطع عبر جميع الأجنة للحفاظ على الاتساق. - حساب متوسط عدد النوى لكل عضلة DA1 لكل جنين، واستخدام هذه القيمة المتوسطة كنقطة بيانات مستقلة واحدة. إدخال نقاط بيانات كل جنين على حدة في برنامج التحليل الإحصائي للتحليل والرسم البياني.
- استخدام اختبار t للطلاب (Student’s t-test) ثنائي الذيل لمقارنة حالتين. استخدام تحليل التباين أحادي الاتجاه (one-way ANOVA) يليه اختبار Dunnett لمقارنة ثلاث حالات أو أكثر، واعتبار القيمة p < 0.05 ذات دلالة إحصائية.
النتائج
تُعرض صفحة تقرير جين spook (spo) في قاعدة بيانات FlyBase كمثال لتوضيح كيفية اختيار أليل طافر مناسب. يُعد spo أحد جينات "Halloween" التي تُشفر الإنزيمات المشاركة في التخليق الحيوي للهرمونات الستيرويدية21,22 وقد ثبت أنه يعزز اندماج الخلايا العضلية23. يدرج قسم "الأليلات" (Alleles) في صفحة تقرير جين spo في FlyBase اثني عشر أليلاً طافراً لـ spo وردت في الدراسات السابقة، أربعة منها مودعة في BDSC (الشكل 2A) ومتاحة بسهولة. وإذا كان الأليل المطلوب غير متوفر من خلال BDSC، فيمكن طلبه مباشرة من المجموعة البحثية التي أبلغت عن السلالة الطافرة في الأصل.
من بين الأليلات الطافرة الأربعة المتاحة من BDSC، يحمل spo1 طفرة مغلطة (G481E)، بينما يحتوي spoMI06810 على إقحام MiMIC ضمن التسلسل المشفر يؤدي إلى إزاحة الإطار عند الحمض الأميني Y341 (الشكل 2B،C). وبما أن بروتين Spo يتكون من 543 حمضاً أمينياً، فمن المتوقع أن ينتج spoMI06810 (Y341fs) بروتيناً مبتوراً يفتقر إلى حوالي 40% من طوله الإجمالي، ومن المرجح لذلك أن يمثل أليلاً قوياً لفقدان الوظيفة. وبناءً على ذلك، يُفضل استخدام spoMI06810 على spo1 للتحليل المظهري لاندماج الخلايا العضلية.
يبدأ اندماج الخلايا العضلية الأولية (Myoblast fusion) خلال المرحلة الجنينية 12 (7.3-9.3 ساعة بعد وضع البيض [AEL]) وينكتمل إلى حد كبير بنهاية المرحلة 15 (11.3-13.3 ساعة AEL)24. وبناءً على ذلك، يتم عادةً تقييم الأنماط الظاهرية للاندماج في أجنة المرحلة 15 المتأخرة، عندما يكون نمط العضلات الجسدية قد تشكل، واكتملت معظم عمليات الاندماج.
يمكن تحديد أجنة المرحلة 15 من خلال ميزتين مورفولوجيتين بارزتين: اكتمال الإغلاق الظهري واكتساب المورفولوجيا المميزة التي تشبه القلب للمعى المتوسط (الشكل 3A–C)19. ويمكن تمييز أجنة المرحلة 14 من خلال استمرار انطواء الرأس (الشكل 3A)، بينما تظهر أجنة المرحلة 15 المعى المتوسط المميز الذي يشبه القلب (الشكل 3B). ويمكن تحديد أجنة المرحلة 16 من خلال تضيق المعى المتوسط وتكوين أربع حجرات (الأعور المعدي؛ الشكل 3C)19. بالإضافة إلى ذلك، لا يمكن الكشف عن تعبير بروتين MHC في المراحل المبكرة، بما في ذلك المرحلة 14، ولكنه يصبح قوياً في المرحلة 15 والمراحل اللاحقة (الشكل 3A–C).
في المرحلة الجنينية المتأخرة 15، يكتمل نمط عضلات جدار الجسم في الأجنة من النوع البري (w1118)، وتُظهر معظم أنصاف القطع البطنية نمطاً عضلياً نمطياً متماثلاً في المنظر الجانبي (الشكل 3B). ويمكن تصور هذا النمط العضلي النمطي باستخدام أجسام مضادة لـ MHC مستخلصة من الأرنب أو الجرذ (الشكل 3B،D). وفي المقابل، يظهر عدد أقل من الألياف العضلية عند تصوير الأجنة في الاتجاه الظهري أو البطني (الشكل 3E،F). وبناءً على ذلك، فإن تصوير الأجنة في الاتجاه الجانبي يتيح تصور كامل عضلات جدار الجسم ويسهل تقييم عيوب اندماج الخلايا العضلية.
لفحص عيوب اندماج الخلايا العضلية البدائية (myoblast)، يتم تصوير عضلات جدار الجسم في الأجنة الطافرة متماثلة الزيجوت في الوضع الجانبي. يتم التعرف على الطفرات متماثلة الزيجوت من خلال غياب علامة موازنة فلورية، مثل GFP أو YFP. على سبيل المثال، تكون الأجنة الطافرة spo متماثلة الزيجوت المشتقة من آباء spoMI06810/TM3, twi>UAS-GFP سالبة لـ GFP، بينما تعبر الأجنة الشقيقة التي تحمل الموازن عن GFP في الأديم المتوسط (الشكل 4B,C). ومقارنة بالأجنة البرية والأجنة الشقيقة الموجبة لـ GFP، تظهر الأجنة الطافرة spo عيباً في اندماج الخلايا العضلية البدائية يتميز بوجود العديد من الخلايا العضلية البدائية القادرة على الاندماج (FCMs) وغير المندمجة (الشكل 4A–C).
ومن الملاحظ وجود عدد أكبر من الخلايا العضلية الجنينية (FCMs) غير المندمجة في المقاطع البصرية العميقة (Z3 و Z4) مقارنة بالمقطع السطحي (Z1) في أجنة طفرة spo (الشكل 4B). ويعكس هذا التوزيع التنظيم المكاني للخلايا المؤسسة والخلايا العضلية الجنينية أثناء اندماج الخلايا العضلية الجنينية. تقع الخلايا المؤسسة والأنابيب العضلية النامية بشكل أساسي في الطبقة السطحية من الأديم المتوسط، بينما تستقر الخلايا العضلية الجنينية في طبقات أعمق قبل أن تهاجر نحو الأنابيب العضلية النامية وتندمج معها25. وبناءً على ذلك، تكون الخلايا العضلية غير المندمجة أكثر وفرة في المقاطع البؤرية العميقة، لا سيما في الأجنة التي تعاني من عيوب اندماج جزئية. لذا، فإن الحصول على مجموعات صور مكدسة (z-stacks) تغطي كامل عمق عضلات جدار الجسم يعد أمراً ضرورياً لتجنب التقليل من شدة نمط الاندماج الظاهري.
على الرغم من أن تصوير العضلات العامة لجدار الجسم في الاتجاه الجانبي يتيح التقييم المظهري لعيوب اندماج الخلايا العضلية، إلا أنه يمكن إجراء تحليل كمي من خلال تصوير عضلة DA1 في الاتجاه الظهري. في أجنة النوع البري، تكون عضلة DA1 مكتملة التكوين وتحتوي على 13.03 ± 0.60 من النوى الموجبة لـ Eve (الشكل 5A،C). أما في أجنة طفرة spo، فينخفض عدد النوى الموجبة لـ Eve في عضلة DA1 إلى 8.16 ± 0.54 (الشكل 5B،C)، مما يشير إلى وجود خلل في الاندماج حيث تندمج عدد أقل من FCMs مع الخلية المؤسسة لـ DA1. ولضمان تكميم متسق وقابل للتكرار، يتم عد النوى الموجبة لـ Eve في عضلات DA1 لنفس القطع النصفية البطنية (A2−A5) وحساب متوسطها لكل جنين، مع استخدام المتوسط المستخرج من كل جنين كنقطة بيانات واحدة للتحليل الإحصائي (الشكل 5C).
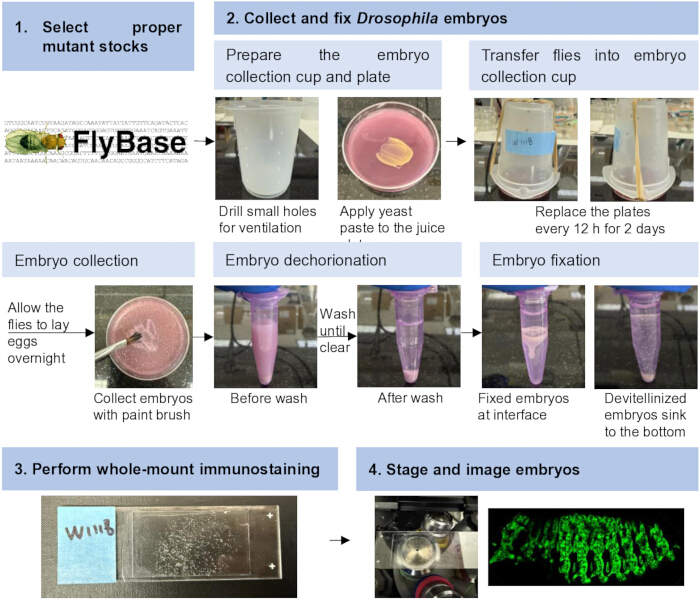
الشكل 1: سير العمل للتحليل الجيني والمظهري والكمي لاندماج الخلايا العضلية الأولية في أجنة Drosophila. يتضمن سير العمل اختيار سلالات الطفرات المناسبة، وجمع الأجنة وتثبيتها، والتلوين المناعي للعينة كاملة وتثبيتها، وتحديد مرحلة الجنين وتصويره. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
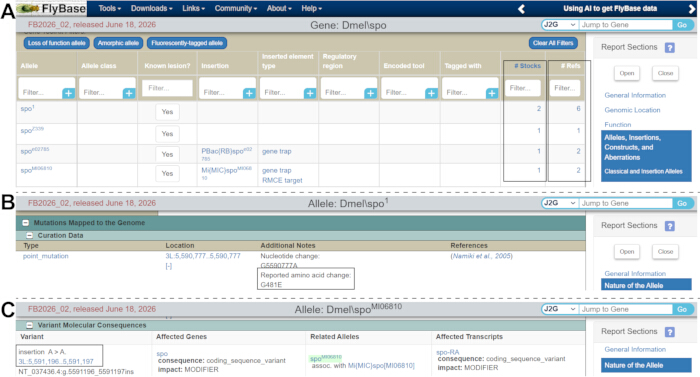
الشكل 2: اختيار الأليلات الطافرة باستخدام FlyBase. (A) لقطة شاشة لصفحة تقرير الجين spo في FlyBase. تظهر الأليلات الطافرة مدرجة في قسم "Alleles". يشير عمود السلالات Stocks (المؤطر) إلى عدد السلالات المتاحة، بينما يشير عمود المراجع Refs (المؤطر) إلى عدد المراجع المرتبطة. (B،C) الآفات الجزيئية لأليلين طافرين ممثلين لـ spo، وهما spo1 (B) و spoMI06810 (C). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
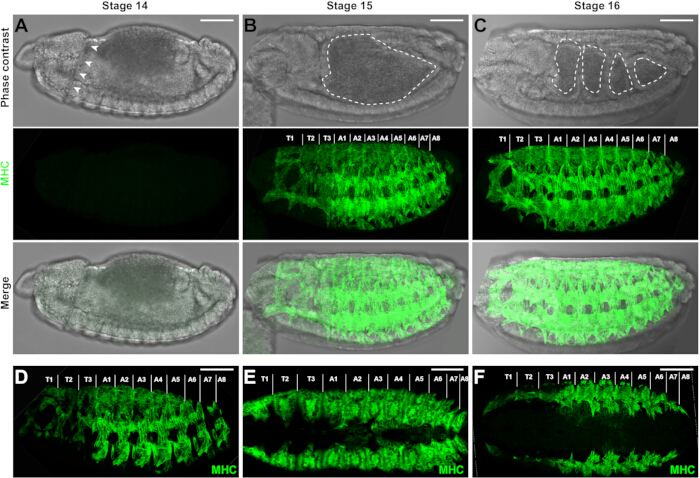
الشكل 3: العضلات الجنينية لذبابة Drosophila. (A–C) صور تباين الطور، وصور مجهرية كونفوكالية بمسقط Z مصبوغة بـ MHC، وصور مدمجة لأجنة النوع البري (WT) في المراحل 14 و15 و16. يظهر انغماس الرأس بوضوح (رؤوس الأسهم) في جنين المرحلة 14 (A). ويُلاحظ وجود معي متوسط مميز على شكل قلب (خط متقطع) في جنين المرحلة 15 (B)، بينما ينقسم المعي المتوسط إلى أربع حجرات متميزة (خطوط متقطعة) في جنين المرحلة 16 (C). لا يمكن اكتشاف تعبير بروتين MHC في المرحلة 14 (A) ولكنه يصبح قوياً في المرحلتين 15 (B) و16 (C). تظهر الأجنة في منظر جانبي، حيث يكون الجانب الأمامي إلى اليسار، والخلفي إلى اليمين، والجانب الظهري للأعلى، والجانب البطني للأسفل. تمت الإشارة إلى القطع العضلية الصدرية (T1–T3) والبطنية (A1–A8). (D) صورة كونفوكالية للمنظر الجانبي للعضلات في جنين WT في المرحلة 15 تم تصويرها باستخدام جسم مضاد لـ MHC من الجرذ. استخدم جسم مضاد لـ MHC من الأرنب للصور في اللوحات الأخرى. (E,F) صور كونفوكالية بمسقط Z للمناظر الظهرية (E) والبطنية (F) للعضلات في أجنة WT في المرحلة 15. يظهر عدد أقل من الألياف العضلية في الاتجاهين الظهري والبطني مقارنة بالاتجاه الجانبي. شريط المقياس = 50 µm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
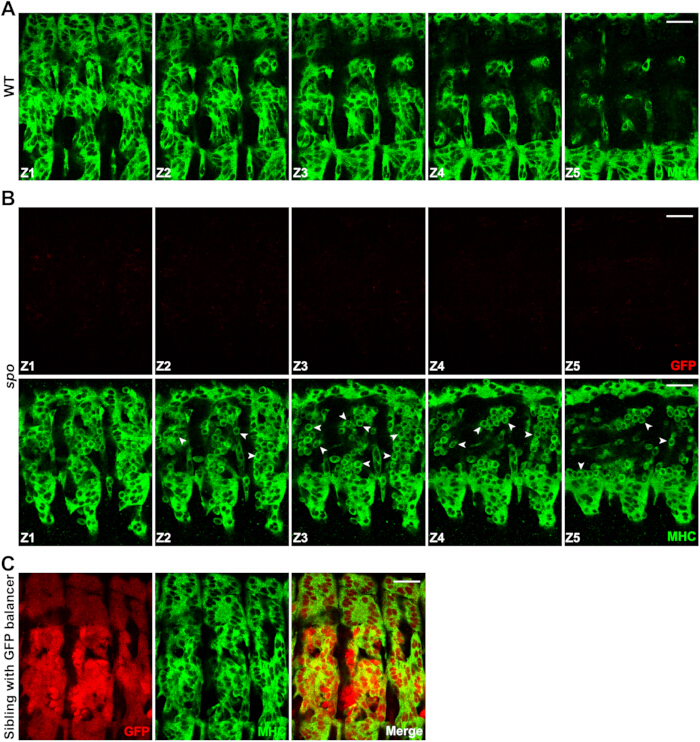
الشكل 4: مقارنة بين الجهاز العضلي في أجنة النوع البري وأجنة طفرة spo. (A) صور ممثلة لمجموعة مقاطع z-stack مأخوذة بالمجهر البؤري لعضلات جدار الجسم في المنظر الجانبي لجنين WT في المرحلة 15 المتأخرة. اندماج الخلايا العضلية مكتمل، ولا تظهر أي خلايا عضلية غير مندمجة. يظهر MHC باللون الأخضر. (B) صور ممثلة لمجموعة مقاطع z-stack مأخوذة بالمجهر البؤري لعضلات جدار الجسم في المنظر الجانبي لجنين طفرة spo سالب لـ GFP تم الحصول عليه من آباء spoMI06810/TM3, twi>UAS-GFP. يشير غياب فلورة GFP (باللون الأحمر) إلى أن الجنين متماثل الزيجوت لـ spoMI06810. تشير رؤوس الأسهم إلى خلايا عضلية ممثلة غير مندمجة. يلاحظ وجود خلايا عضلية غير مندمجة في المقاطع البصرية الأكثر عمقاً (Z3 و Z4) مقارنة بما هو موجود قرب سطح الجنين (Z1). يظهر MHC باللون الأخضر. (C) صور مجهرية بؤرية للمنظر الجانبي لجنين شقيق موجب لـ GFP تم الحصول عليه من نفس الآباء spoMI06810/TM3, twi>UAS-GFP. يميز تعبير GFP الأديمي المتوسط (باللون الأحمر) الناتج عن transgene twi>UAS-GFP على الموازن TM3 الأجنة الشقيقة الموجبة لـ GFP عن أجنة طفرة spo متماثلة الزيجوت والسالبة لـ GFP. يظهر MHC باللون الأخضر. شريط المقياس = 20 µm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
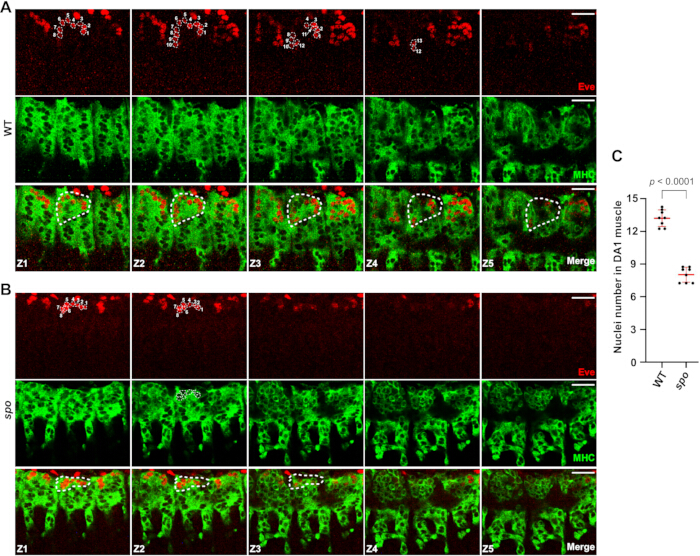
الشكل 5: صور ممثلة لمسح z-stack بالمجهر البؤري والتحليل الكمي لعضلات DA1. (A,B) صور z-stack بالمجهر البؤري للمناظر الظهرية لأجنة المرحلة 15 المتأخرة من النوع البري WT (A) والطفرة spo (B) المصبوغة بـ anti-MHC (الأخضر) و anti-Eve (الأحمر). تم الحصول على صور z-stack عبر كامل عمق عضلة DA1 الموجبة لـ Eve لالتقاط جميع النوى داخل العضلة. تظهر النوى الموجبة لـ Eve كمناطق غير مصبوغة ضمن إشارة MHC. تم تحديد عضلة DA1 ممثلة بخط متقطع، وتم ترقيم النوى الموجبة لـ Eve داخل عضلة DA1. (C) التحليل الكمي للنوى الموجبة لـ Eve في عضلات DA1 لأجنة WT وأجنة الطفرة spo. تم تحليل ثمانية أجنة لكل نمط جيني. تمثل كل نقطة بيانات متوسط عدد النوى في عضلات DA1 في القطاعات النصفية A2–A5 من جنين واحد. تظهر البيانات كمتوسط ± SD (الأعمدة الحمراء). تم تحديد الدلالة الإحصائية باستخدام اختبار Student’s t-test ثنائي الذيل؛ p < 0.0001. شريط المقياس = 20 µm. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| رقم السلالة في BDSC | النمط الجيني | الغرض |
| 6873 | ن1/FM7c, twi>UAS-GFP | يتيح تعبير البروتين الفلوري الأخضر (GFP) في الأديم المتوسط تحديد الأجنة الطافرة متماثلة الزيجوت التي لا تعبر عن البروتين الفلوري الأخضر. |
| 6662 | هذا النص قصير جداً (wg) ولا يبدو أنه يحتوي على محتوى علمي أو تعليمي قابل للترجمة. يرجى تزويدي بالنص الكامل المراد ترجمته.Gla-1/CyO, twi>UAS-GFP | |
| 6663 | د.ميو/TM3، twi>UAS-GFP | |
| 23229 | باز4/FM7c, Dfd-YFP | يسمح التعبير عن البروتين الفلوري الأصفر (YFP) في الرأس بتحديد الأجنة الطافرة متماثلة الزيجوت السالبة لـ YFP. |
| 23230 | تحليل الشبكات الاجتماعيةسكوب/ CyO, Dfd-YFP | |
| 23232 | دكتور1/TM6B, Dfd-YFP |
الجدول 1: سلالات Drosophila التي تحمل جين علامة فلورية على كروموسومات موازنة (balancer chromosomes).
المناقشة
يوفر البروتوكول الموصوف هنا سير عمل شاملاً للتحليل الجيني والظاهري والكمي لاندماج الخلايا العضلية الأولية (myoblast fusion) في أجنة Drosophila. ومن المهم الإشارة إلى أن ملاحظة خلل في الاندماج في سلالة طافرة تتطلب تحليلات جينية إضافية للتحقق من أن الجين المعني هو المسؤول عن النمط الظاهري الملحوظ. فقد تتراكم طفرات خلفية تلقائية أثناء الحفاظ على السلالات وتساهم في ظهور الأنماط الظاهرية الطافرة26. ويتمثل أحد النهج في فحص الأجنة متغايرة الزيجوت العابرة (trans-heterozygous embryos) الناتجة عن تهجين الأليل الطافر مع نقص صبغي يؤدي إلى حذف الجين المعني. إن ملاحظة ذات خلل الاندماج في هذه الأجنة من شأنه أن يدعم الاستنتاج بأن النمط الظاهري ناتج عن تعطل الجين المرشح وليس عن طفرات خلفية غير ذات صلة. كما يمكن لتجارب الإنقاذ الجيني، مثل تلك التي تستخدم نظام GAL4/UAS27، أن توفر مزيداً من التحقق من خلال تحديد ما إذا كان التعبير عن الجين المعني يستعيد الاندماج الطبيعي للخلايا العضلية الأولية في الأجنة الطافرة.
على الرغم من أن مشروع تعطيل جينات Drosophila قد أنتج مجموعة متاحة للجمهور من السلالات الطافرة التي تغطي ما يقرب من 75% من جينات Drosophila28، إلا أن الأليلات الطافرة المناسبة، وخاصة أليلات فقدان الوظيفة القوية، قد لا تكون متاحة لكل جين مستهدف. في مثل هذه الحالات، يمكن أن تعمل سلالات النقص الكروموسومي كمورد بديل لتقييم ما إذا كان الجين المرشح مشاركاً في اندماج الخلايا العضلية الأولية. وتغطي مجموعات سلالات النقص المتاحة حالياً أكثر من 98% من الجينوم الكروماتيني الحقيقي لـ Drosophila29، مما يسمح بتحليل فقدان الوظيفة لجميع الجينات تقريباً. ويمكن تحديد حالات النقص الكروموسومي ضمن قسم "الزيغ" (Aberrations) في تقرير جين FlyBase. ومع ذلك، وبما أن كل سلالة نقص تزيل جينات متعددة، فإن خلل اندماج الخلايا العضلية الأولية الملاحظ في أجنة النقص متماثلة الزيجوت لا يمكن عزوه إلى جين معين داخل المنطقة الكروموسومية المحذوفة دون إجراء مزيد من التحقق. لذا، عند تحديد خلل في الاندماج باستخدام سلالة نقص، يجب توليد طفرة تعطيل لجين واحد وتحليلها لتحديد الدور المحدد للجين المرشح في اندماج الخلايا العضلية الأولية.
على الرغم من أن هذا البروتوكول يركز على التحليل المظهري للطفرات في جينات فردية ذات أهمية، إلا أنه يمكن تطبيق سير العمل هذا أيضاً في عمليات فحص النقص واسعة النطاق للبحث عن منظمات جديدة لاندماج الخلايا العضلية باستخدام مجموعات النقص المتاحة29. بالإضافة إلى ذلك، فإن استبدال أجسام MHC المضادة بأجسام مضادة ضد منظمات محددة لاندماج الخلايا العضلية يسمح بتكييف سير العمل العام، بما في ذلك جمع الأجنة والتثبيت والتلوين المناعي، لفحص تموضع البروتين بالنسبة للمشبك الاندماجي. وأخيراً، يمكن تكييف الطرق الموصوفة هنا للتحليل المظهري لعمليات نمو جنينية أخرى بخلاف اندماج الخلايا العضلية، مما يوسع فائدة البروتوكول لتشمل نطاقاً أوسع من الدراسات النمائية.
الإفصاحات
يقر المؤلفون بعدم وجود أي تضارب في المصالح. وقد استُخدم ChatGPT 5 (OpenAI) حصرياً لتحرير القواعد واللغة، ولم يُستخدم لإنشاء محتوى علمي أو بيانات أو تحليلات أو أشكال.
شكر وتقدير
نتوجه بالشكر إلى مركز بلومنجتون للمخزونات (Bloomington stock center) لتوفير سلالات الذباب. تم دعم هذا العمل من خلال منح المعهد الوطني للصحة (NIH) رقم R01AR085116 ورقم R35GM136316 المقدمة إلى E.H.C.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| آغار | فيشر | BP1423-500 | مسحوق الآجار؛ يُستخدم لتحضير وسط زراعة صلب. |
| ألبومين المصل البقري (BSA) | سيجما | A7906 | ألبومين المصل البقري؛ يُستخدم لتحضير محاليل الحجب أثناء الصبغ المناعي. |
| المجهر البؤري (المجهر الكونفوكالي) | Leica | SP8 | مجهر بؤري ماسح بالليزر يُستخدم للتصوير الفلوري للعينات المصبوغة. |
| المجهر البؤري (Confocal microscope) | Nikon | مستقبل A1R | مجهر بؤري مسحي ليزري يُستخدم للتصوير الفلوري للعينات المصبوغة. |
| غطاء الشريحة | فيشر | 12-545-CP | غطاء شريحة زجاجي، ٤٠ ملم × 22 مم؛ تُستخدم لتثبيت العينات المخصصة للفحص المجهري. |
| طبق زراعة | Corning | 430166 | طبق زراعة بمقاس 60 مم؛ يُستخدم لمناولة العينات البيولوجية أو زراعتها أو معالجتها. |
| خميرة جافة | سيجما | YSC2 | يُستخدم الخميرة الجافة كمصدر غذائي لاستزراع الكائنات الحية. |
| فورمالدهيد، 37% | فيشر | BP531-500 | محلول فورمالديهايد مركز يُستخدم لتحضير المثبت. تنبيه: مادة سامة ومتطايرة؛ يجب التعامل معها باستخدام معدات الوقاية الشخصية المناسبة وداخل خزانة استرداد الأدخنة الكيميائية. |
| جسم مضاد من الماعز مضاد للغلوبولين المناعي G من الفأر 647 | ThermoFisher | A-21236 | جسم مضاد ثانوي من الماعز مضاد لـ IgG الفأري مقترن بفلوروفور للكشف الفلوري عن الأجسام المضادة الأولية للفئران. |
| جسم مضاد من الماعز مضاد لـ IgG الأرنب 568 | ThermoFisher | A-11036 | جسم مضاد ثانوي من الماعز مضاد لـ IgG الأرنب مقترن بفلوروفور للكشف الفلوري عن الأجسام المضادة الأولية للأرنب. |
| هبتان | فيشر | H350 | مذيب عضوي يُستخدم أثناء تثبيت العينة ونفاذيتها. تنبيه: مادة قابلة للاشتعال وضارة؛ يجب التعامل معها داخل خزانة استخلاص كيميائية مع استخدام معدات الوقاية الشخصية المناسبة. |
| حضّانة | بيرسيفال | I36LL | حضّانة ذات تحكم حراري تُستخدم للحفاظ على المزارع الخلوية أو الكائنات التجريبية تحت ظروف بيئية محددة. |
| ميثانول | Pharmco | 339000ACSBK01 | يُستخدم الميثانول أثناء تثبيت العينات، أو تجفيفها، أو نفاذيتها. تنبيه: مادة قابلة للاشتعال وسامة؛ يجب التعامل معها داخل خزانة استخلاص الغازات الكيميائية مع استخدام معدات الوقاية الشخصية المناسبة. |
| شرائح المجهر | فيشر | 12-550-15 | شرائح مجهرية زجاجية تُستخدم لتثبيت العينات من أجل التصوير. |
| وسط التثبيت | ThermoFisher | P36980 | وسط تثبيت مضاد للتلاشي يُستخدم للحفاظ على الفلورة وتثبيت العينات المصبوغة للفحص المجهري. |
| جسم مضاد للفأر ضد بروتين Even skipped (Eve) | DSHB | 2B8 | جسم مضاد أولي أحادي النسيلة من الفئران يتعرف على بروتين Even skipped؛ يُستخدم في صبغ التألق المناعي. |
| جهاز الرّج المائل (Nutator) | Corning | 6720 | خلاط تمايلي مكتبي يُستخدم للتقليب اللطيف والمستمر للعينات خلال خطوات الغسيل، أو الحجب، أو تحضين الأجسام المضادة. |
| كأس بلاستيكي | سيجما | Z245380 | يُستخدم الكأس البلاستيكي سعة 100 مل لعمل كوب تجميع الذباب. |
| جسم مضاد للأرنب ضد السلسلة الثقيلة للميوزين (MHC) | — | — | جسم مضاد أولي من الأرنب يتعرف على السلسلة الثقيلة للميوزين في ذبابة الفاكهة (Drosophila)؛ مصدر الجسم المضاد موصوف من قبل Kiehart و Feghali (1986)، مجلة Journal of Cell Biology 103, 1517–1525. |
| جسم مضاد من الجرذ ضد سلسلة الميوزين الثقيلة (MHC) | DSHB | BB7/21.14 | جسم مضاد أولي أحادي النسيلة من الجرذ يتعرف على السلسلة الثقيلة للميوزين؛ يستخدم للتلوين المناعي الفلوري. |
| أزيد الصوديوم (NaN₃)3) | سيجما | S8032 | يُستخدم أزيد الصوديوم كمادة حافظة في محاليل الأجسام المضادة أو المحاليل المنظمة. تنبيه: مادة شديدة السمية؛ يجب تجنب بلعها أو استنشاقها أو ملامستها للجلد أو ملامستها للمعادن. |
| Triton X-100 | فيشر | AAA16046AP | منظف غير أيوني يُستخدم لنفاذية الغشاء وتحضير محاليل الغسيل أو محاليل الحجب. |
| 10× المحلول الملحي المنظم بالفوسفات (PBS) | فيشر | BP3994 | محلول ملحي منظم بالفوسفات مركز يستخدم لتحضير 1× محلول PBS للغسيل، والتخفيف، وتحضير المحلول المنظم. |
المراجع
- Abmayr SM, Pavlath GK. Myoblast fusion: Lessons from flies and mice. Development. 2012;139(4):641-656.
- Petrany MJ, Millay DP. Cell fusion: Merging membranes and making muscle. Trends Cell Biol. 2019;29(12):964-973.
- Wherley TJ et al. Current topics in developmental biology. Vol. 158. Academic Press; 2024:53-82.
- Millay DP. Regulation of the myoblast fusion reaction for muscle development, regeneration, and adaptations. Exp Cell Res. 2022;415(2):113134.
- Dworak HA, Sink H. Myoblast fusion in Drosophila. Bioessays. 2002;24(7):591-601.
- Schejter ED. Myoblast fusion: Experimental systems and cellular mechanisms. Semin Cell Dev Biol. 2016;60:112-120.
- Deng S, Azevedo M, Baylies M. Acting on identity: Myoblast fusion and the formation of the syncytial muscle fiber. Semin Cell Dev Biol. 2017;72:45-55.
- Lee DM, Chen EH. Drosophila myoblast fusion: Invasion and resistance for the ultimate union. Annu Rev Genet. 2019;53:67-91.
- Bate M. The development of Drosophila melanogaster. CSH Laboratory Press; New York; 1993:1013-1090.
- Baylies MK, Bate M, Ruiz Gomez M. Myogenesis: A view from Drosophila. Cell. 1998;93(6):921-927.
- Chen EH, Olson EN. Towards a molecular pathway for myoblast fusion in Drosophila. Trends Cell Biol. 2004;14(8):452-460.
- Sens KL et al. An invasive podosome-like structure promotes fusion pore formation during myoblast fusion. J Cell Biol. 2010;191(5):1013-1027.
- Kim JH et al. Mechanical tension drives cell membrane fusion. Dev Cell. 2015;32(5):561-573.
- Chen EH. Invasive podosomes and myoblast fusion. Curr Top Membr. 2011;68:235-258.
- Kim JH, Jin P, Duan R, Chen EH. Mechanisms of myoblast fusion during muscle development. Curr Opin Genet Dev. 2015;32:162-170.
- Kim JH, Chen EH. The fusogenic synapse at a glance. J Cell Sci. 2019;132(18).
- Haralalka S, Abmayr SM. Myoblast fusion in Drosophila. Exp Cell Res. 2010;316(18):3007-3013.
- Kiehart DP, Feghali R. Cytoplasmic myosin from Drosophila melanogaster. J Cell Biol. 1986;103(4):1517-1525.
- Campos-Ortega JA, Hartenstein V. The embryonic development of Drosophila melanogaster. 2nd ed. Springer Berlin Heidelberg; Berlin, Heidelberg; 1997:9-102.
- De Joussineau C, Bataille L, Jagla T, Jagla K. Diversification of muscle types in Drosophila: Upstream and downstream of identity genes. Curr Top Dev Biol. 2012;98:277-301.
- Namiki T et al. Cytochrome P450 CYP307A1/Spook: A regulator for ecdysone synthesis in insects. Biochem Biophys Res Commun. 2005;337(1):367-374.
- Niwa R, Niwa YS. Enzymes for ecdysteroid biosynthesis: Their biological functions in insects and beyond. Biosci Biotechnol Biochem. 2014;78(8):1283-1292.
- Ruan ZR, Yu Z, Xing C, Chen EH. Inter-organ steroid hormone signaling promotes myoblast fusion via direct transcriptional regulation of a single key effector gene. Curr Biol. 2024;34(7):1438-1452.e6.
- Beckett K, Baylies MK. 3D analysis of founder cell and fusion competent myoblast arrangements outlines a new model of myoblast fusion. Dev Biol. 2007;309(1):113-125.
- Richardson B, Beckett K, Baylies M. Visualizing new dimensions in Drosophila myoblast fusion. BioEssays. 2008;30(5):423-431.
- Huang W et al. Spontaneous mutations and the origin and maintenance of quantitative genetic variation. eLife. 2016;5.
- McGuire SE, Roman G, Davis RL. Gene expression systems in Drosophila: A synthesis of time and space. Trends Genet. 2004;20(8):384-391.
- Bellen HJ et al. The Drosophila Gene Disruption Project: Progress using transposons with distinctive site specificities. Genetics. 2011;188(3):731-743.
- Cook RK et al. The generation of chromosomal deletions to provide extensive coverage and subdivision of the Drosophila melanogaster genome. Genome Biol. 2012;13(3).
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً