يقلل الوخز الإبري الكهربائي من فشل القلب المزمن وإعادة تشكيل القلب المرضي من خلال استعادة النشاط العصبي داخل نواة المسار المنفرد. ويرتبط هذا التعديل العصبي المركزي العلاجي بزيادة تنظيم عامل النسخ YY1، وهو الهدف البيولوجي المرشح.
مقالة بحثية
الآليات المركزية للوخز الإبري الكهربائي في فشل القلب المزمن: رؤى من التحليل البروتومي الكمي للنواة الشوكية الوحيدة
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
يُعد فشل القلب المزمن (CHF) أحد الأسباب العالمية الرئيسية للوفيات الناجمة عن أمراض القلب والأوعية الدموية، ويقوده خلل في التنظيم الذاتي وفرط في نشاط الجهاز السمبثاوي. وبينما يُحدث الوخز الإبري الكهربائي (EA) تأثيرات واقية للقلب عبر التعديل العصبي المركزي، إلا أن أهدافه الجزيئية المحددة داخل النواة المفردة (NTS)، وهي مركز تكامل ذاتي رئيسي، لا تزال غير واضحة. وللبحث في ذلك، تم إنشاء نموذج جرذ لفشل القلب المزمن عبر ربط الشريان التاجي الأمامي النازل الأيسر. تلقت الجرذان الوخز الإبري الكهربائي عند نقاط الوخز HT7 ثنائية الجانب لمدة سبعة أيام متتالية. وتم تقييم وظيفة القلب وإصابة عضلة القلب باستخدام تخطيط صدى القلب، ومقايسات الامتصاص المناعي المرتبط بالإنزيم، والتلوين النسيجي. كما تم تقييم النشاط العصبي للنواة المفردة عبر الفلورة المناعية لبروتين c-Fos والفيزيولوجيا الكهربائية في الجسم الحي. واستُكشفت الآليات الجزيئية باستخدام البروتيوميات الكمية والمعلوماتية الحيوية، مع التحقق من الأهداف الأساسية عبر تفاعل البوليميراز المتسلسل الكمي وبصمة ويسترن. وقد أدى الوخز الإبري الكهربائي إلى تحسين الكسر القذفي للبطين الأيسر، وتخفيف تليف عضلة القلب، وتقليل مؤشرات فشل القلب في المصل. وبالمجمل، استعاد الوخز الإبري الكهربائي معدلات إطلاق الخلايا العصبية التلقائية، وطاقة الجهد الميداني المحلي، وتعبير c-Fos داخل النواة المفردة. وحدد التوصيف البروتيومي 85 بروتيناً أساسياً متباين التعبير تم تعديلها بواسطة الوخز الإبري الكهربائي. وكشف التصنيف الوظيفي لـ 58 بروتيناً منخفض التعبير و27 بروتيناً مرتفع التعبير عن مشاركتها على التوالي في تنظيم المصفوفة خارج الخلوية وإعادة تشكيل الكروماتين المعتمدة على ATP. وحدد نهج الفرز التدريجي، الذي يدمج رسم الخرائط الشبكية الطوبولوجية، وإثراء المسارات، وتوصيف التعبير النسيجي، عامل النسخ YY1 كهدف مرشح عالي الاستجابة. وأكد التحقق في الجسم الحي أن الوخز الإبري الكهربائي رفع من تعبير YY1. وبشكل عام، خفف الوخز الإبري الكهربائي من إعادة التشكيل المرضي للقلب واستعاد النشاط العصبي للنواة المفردة. وتم تحديد YY1 كهدف مرشح مرتبط بهذا التعديل العصبي المركزي، مما يوفر رؤية جزيئية للآليات الكامنة وراء تأثيرات الوخز الإبري الكهربائي في حالات فشل القلب المزمن.
المقدمة
يُعرف فشل القلب المزمن (CHF) على نطاق واسع بأنه المرحلة النهائية لمختلف الأمراض القلبية الوعائية، ولا يزال سبباً رئيسياً للوفيات القلبية الوعائية في جميع أنحاء العالم، مما يشكل عبئاً هائلاً على أنظمة الرعاية الصحية العالمية1. وينتج التطور الفسيولوجي المرضي لفشل القلب المزمن (CHF) بشكل أساسي عن خلل في تنظيم الجهاز العصائي الذاتي، والذي يتميز بتنشيط سمبثاوي مستمر وانسحاب باراسمبثاوي2. لذا، يُعتبر استعادة التوازن الذاتي استراتيجية علاجية حاسمة للتخفيف من إعادة تشكيل القلب المرضي وتحسين وظائف القلب العامة3.
يمثل الوخز الإبري الكهربائي (EA) تطوراً حديثاً للوخز الإبري التقليدي، وقد اكتسب اعترافاً واسعاً بفعاليته السريرية في علاج أمراض القلب والأوعية الدموية4. وقد سلطت الأبحاث المكثفة، بما في ذلك دراساتنا السابقة، الضوء على أن هذا العلاج يمارس تأثيرات وقائية كبيرة للقلب، وذلك بشكل أساسي من خلال تعديل الجهاز العصبي الذاتي المركزي. وتحديداً، أثبتنا أن الوخز الإبري الكهربائي عند نقطة Shenmen (HT7) يمكن أن يثبط بشكل فعال التدفق السمبثاوي المفرط ويستعيد التوازن السمبثاوي المبهمي عبر آليات عصبية مركزية مستهدفة، مما يؤدي بالتالي إلى تخفيف التطور المرضي لفشل القلب الاحتقاني (CHF)5,6,7,8.
تعد النواة السبيلية الوحيدة (NTS)، الواقعة في النخاع المستطيل، مركز تكامل حيوي للحفاظ على التوازن اللاإرادي المركزي. فهي تعمل كمحطة ترحيل أساسية للمنعكسات القلبية الوعائية والمدخلات الحسية الطرفية، مما ينظم التوازن الديناميكي بين النغمة السمبثاوية والومبثاوية9. وبالرغم من أهميتها التشريحية والوظيفية، فإن التغيرات الجزيئية المحددة داخل هذا المركز الحيوي في جذع الدماغ أثناء العلاج بالوخز الكهربائي (EA) لفشل القلب الاحتقاني (CHF) لا تزال غير معروفة إلى حد كبير. ويوفر التحليل البروتومي المتقدم عالي الإنتاجية مقترناً بتحليل المعلوماتية الحيوية أداة قوية لرسم خرائط غير منحازة لشبكات البروتين المعقدة وشلالات التأشير المشاركة في هذه العملية العصبية الحيوية المركزية10.
لذلك، هدفت هذه الدراسة إلى استقصاء تأثيرات التحفيز الكهربائي للإبر (EA) عند نقطة الوخز HT7 على الوظيفة القلبية والنشاط العصبي للنواة المنعزلة (NTS) في حالات فشل القلب الاحتقاني (CHF)، وتوصيف التغيرات الجزيئية داخل النواة المنعزلة المرتبطة بالعلاج بالتحفيز الكهربائي للإبر. ومن خلال دمج الفسيولوجيا الكهربائية الحيوية مع البروتيوميات الكمية والتحليل المعلوماتي الحيوي والتحقق الجزيئي، سعت هذه الدراسة إلى تحديد الأهداف الجزيئية المرشحة المرتبطة بالتعديل العصبي المركزي بوساطة التحفيز الكهربائي للإبر في حالات فشل القلب الاحتقاني.
البروتوكول
تم إجراء جميع الطرق التي تضمنت حيوانات فقارية وفقاً لامتثال لجنة رعاية واستخدام الحيوان في جامعة آنهوي للطب الصيني، بموجب رقم الموافقة AHUCM-rats-2024145. الكواشف والمعدات المستخدمة مدرجة في جدول المواد.
تحضير الحيوانات وتوزيعها على المجموعات
استُخدمت في جميع التجارب ذكور جرذان Sprague-Dawley من درجة نظيفة، تبلغ أعمارها 8 أسابيع وتتراوح أوزانها بين 200 و250 g. وُضعت الحيوانات في بيئة خاضعة للرقابة تم الحفاظ فيها على درجة حرارة 24 ± 2 °C ورطوبة نسبية تتراوح بين 50%–60%، تحت دورة إضاءة وإظلام قياسية مدتها 12 h. ووُفرت لجميع الجرذان أغذية ومياه للشرب حسب الطلب، كما خضعت لفترة تأقلم مدتها أسبوع واحد قبل بدء أي إجراءات تجريبية.
بالنسبة للتجربة الأولى، التي قيمت النشاط العصبي الوظيفي والمركزي، تم تقسيم 24 من الجرذان عشوائياً إلى أربع مجموعات تضم كل منها ستة حيوانات: مجموعة Sham، ومجموعة CHF، ومجموعة EA، ومجموعة Sham EA (الشكل 1A). وبالنسبة للتجربة الثانية، التي قيمت الأهداف الجزيئية والبروتوميات عالية الإنتاجية، تم توزيع 36 من الجرذان عشوائياً على ثلاث مجموعات تضم كل منها 12 جرذاً: Sham وCHF وEA. وقد تم تحديد أحجام العينات بناءً على طريقة معادلة الموارد (Resource Equation Method) للالتزام بأخلاقيات رفاهية الحيوان ومبدأ تقليل العدد مع ضمان الصلاحية الإحصائية (قيمة E = 20 للتجربة الأولى؛ وقيمة E = 33 للتجربة الثانية)11. وكانت استراتيجية حجم العينة هذه متوافقة مع البروتوكولات المستخدمة في دراسات سابقة حول EA لأمراض القلب والأوعية الدموية8,12. وأشارت تحليلات القوة البعدية (Post hoc power analyses) إلى أن القوة الإحصائية التي تتجاوز 0.90 تدعم كفاية هذا التوزيع. تم استبعاد مجموعة Sham EA من التجربة الثانية لأن التقييمات الوظيفية الأولية أشارت إلى نقص في الفعالية العلاجية.
إنشاء نموذج فشل القلب المزمن
صِيمت الجرذان لمدة 12 h قبل الجراحة مع إتاحة الوصول الحر إلى الماء. تم تحريض التخدير باستخدام 3% isoflurane والحفاظ عليه بنسبة 1.5%–2% isoflurane أثناء الإجراء. ونظراً لأن isoflurane مخدر متطاير، فقد تم استخدام نظام تخلص فعال، وأُجري الإجراء في منطقة جيدة التهوية لمنع التعرض المهني.
تم تسجيل تخطيطات كهربية القلب (ECG) القياسية للأطراف بشكل مستمر. أُجري بضع صدر أيسر للكشف عن القلب، وتم ربط الشريان التاجي الأيسر النازل (LAD) بشكل دائم على مسافة 2 إلى 3 mm أسفل الزائدة الأذينية اليسرى باستخدام غرزة جراحية غير قابلة للامتصاص قياس 7-013. تم تأكيد نجاح نقص التروية من خلال تحديد ارتفاع في قطعة ST بمقدار 0.2 mV على الأقل في تخطيط كهربية القلب (الشكل 1B). أُعطيت حقن داخل الصفاق من البنسلين (200,000 U/mL) وحقن تحت الجلد من الكاربروفين (5 mg/kg) يومياً لمدة ثلاثة أيام متتالية بعد الجراحة لمنع العدوى وتخفيف الألم.
بالنسبة لمجموعة التحكم الصورية، أُجري إجراء بضع صدر مماثل، تلاه إدخال إبرة سطحي في الموقع التشريحي المقابل دون ربط الشريان التاجي الأمامي النازل (LAD). كما قُدمت رعاية ومراقبة مماثلتان لما بعد الجراحة. أُجري تقييم تخطيط صدى القلب بعد 4 أسابيع من الجراحة. واعتُبر النموذج قد تأسس بنجاح عندما كان الكسر القذفي للبطين الأيسر (LVEF) ≤45%8 (الشكل 1C). استُبعدت بشكل منهجي الحيوانات التي فشلت في تلبية هذه المعايير، أو التي ظهرت لديها تشوهات في تخطيط كهربية القلب الأساسي قبل الجراحة، أو التي تعرضت لوفاة مبكرة. كما خضعت جرذان إضافية لبروتوكولات جراحية مماثلة لاستبدال الحيوانات المستبعدة فوراً والحفاظ على حجم عينة موحد.
تدخل الوخز الإبري الكهربائي
وفقاً لبروتوكولات التشريح المقارن المعتمدة14، تم تحديد نقاط الوخز HT7 الثنائية على مسار القلب-شاوين باليد عند الجانب الراحي لثنية المعصم المستعرضة بالقرب من الحدود الزندية، مباشرةً داخل المنخفض الكعبري لوتر العضلة ثانية الرسغ الزندية. تم تعقيم المنطقة الموضعية بشكل روتيني. ثم أُدخلت إبرتان معقمتان للاستخدام مرة واحدة (0.25 x 25 mm) بشكل عمودي في منطقة كل نقطة وخز HT7 وصولاً إلى عمق مستهدف يتراوح بين 2 to 3 mm، ووُضعت الإبرتان بمسافة فاصلة تبلغ حوالي 1 mm لضمان بقائهما بدقة ضمن منطقة نقطة الوخز ذاتها. ولأغراض التوثيق بالفيديو، تم التحقق بصرياً من عمق الإدخال عن طريق وضع علامة مسبقة على ساق الإبرة عند موضع 3 mm قبل الإدخال.
تم توصيل إبرة واحدة بالطرف الكاثودي لجهاز EA، وتم توصيل الإبرة المجاورة بالطرف الأنودي لإنشاء دائرة كهربائية موضعية (الشكل 1D). تم إرسال موجة كهربائية مستمرة بتردد ثابت قدره 2 Hz وشدة 1 mA، تمت معايرتها لإحداث تشنجات عضلية طفيفة وملحوظة في الأطراف المقابلة، لمدة 30 min يومياً على مدار سبعة أيام متتالية تحت التخدير بـ isoflurane.
طُبِّق بروتوكول وخز أدنى على مجموعة التدخل الوهمي لمراعاة الاستجابات الحسية الجسدية غير النوعية15,16. حيث أُدخلت إبر معقمة بشكل سطحي إلى عمق 0.5–1 mm في مواقع HT7 ذاتها دون توصيل أسلاك كهربائية أو تمرير تيار، وبمدة تخدير مطابقة بلغت 30 min. أما مجموعات الضبط المتمثلة في مجموعة Sham ومجموعة CHF عند خط الأساس، فقد خضعت لتعرض يومي متماثل للإيزوفلوران (1.5%–2% isoflurane لمدة 30 min يومياً على مدار سبعة أيام متتالية) دون وخز بالإبر أو تحفيز كهربائي. وقد عمل هذا الإجراء على توحيد خط الأساس التخديري عبر جميع المجموعات التجريبية، والسيطرة على أي آثار جانبية محتملة مثبطة للجهاز العصبي أو واقية للقلب قد تنتج عن التخدير المتكرر بالغازات الطيارة.
تقييم تخطيط صدى القلب والقتل الرحيم للحيوانات
بعد التدخل، خُدرت الجرذان باستخدام 3% من الإيزوفلوران للتحريض و1% للحفاظ على التخدير، وثُبتت في وضعية الاستلقاء الظهري على منصة الحيوانات. أُزيل شعر الصدر بعناية باستخدام عامل إزالة الشعر، ووُضع عامل اقتران صوتي بشكل موحد على الجلد المكشوف. تم تقييم وظائف القلب باستخدام نظام الموجات فوق الصوتية الرقمي المجهز بمحول صدى بتردد 18 MHz. سُجل تخطيط صدى القلب بنمط M-mode لقياس كسر القذف للبطين الأيسر LVEF والتقصير الجزئي للبطين الأيسر LVFS، وحُسب متوسط القيمة من 3 مكررات تقنية للتحليل النهائي.
تم سحب الدم من الأبهر البطني بينما ظلت الحيوانات تحت تأثير التخدير لمنع فقدان الدم والتجلط اللاحق وضمان جودة العينات اللازمة لإجراء مقايسة الممتز المناعي المرتبط بالإنزيم (ELISA). بعد ذلك، تم قتل الجرذان رحمانياً على الفور عن طريق الحث المستمر باستخدام 5% isoflurane حتى توقف ضربات القلب والتنفس.
وُزعت عينات الأنسجة لاحقاً وفقاً للتصميم التجريبي. وفي التجربة الأولى (Experiment I)، استُخدمت 3 جرذان لكل مجموعة لاستئصال القلب من أجل صبغة الهيماتوكسيلين والإيوزين (HE)/صبغة ماسون (Masson staining)، واستئصال الدماغ لإجراء الفلورة المناعية لبروتين c-Fos. بينما خُصصت الجرذان الثلاثة المتبقية لإجراء الفسيولوجيا الكهربائية في الجسم الحي (in vivo electrophysiology). وفي التجربة الثانية (Experiment II)، استُخلصت أنسجة النواة المنعزلة (NTS) ثنائية الجانب من ستة جرذان لكل مجموعة لإجراء التحليل البروتومي. أما أنسجة الجرذان الستة المتبقية فقد استُؤصلت للتحقق الجزيئي: حيث استُخدمت ثلاثة منها لتقنية لطخة ويسترن (Western blotting) وتفاعل البوليميراز المتسلسل الكمي (qPCR)، وثلاثة أخرى استُخدمت حصرياً لتقنية qPCR.
المقايسة المناعية المرتبطة بالإنزيم
تُرِكت عينات الدم التي جُمعت لتتجلط طبيعياً عند 4 °C لمدة 10–20 دقيقة. ثم عُزلت العينات بواسطة جهاز الطرد المركزي عند 1,000 x g لمدة 15 دقيقة عند 4 °C لفصل المصل، وجُمعت الرواسب الطافية. وفي حال لم يتم إجراء التحليل فوراً، خُزنت عينات المصل عند −80 °C حتى وقت الحاجة إليها. وقُدِّرت تركيزات N-terminal pro-brain natriuretic peptide (NT-proBNP) وcardiac troponin T (cTnT) في المصل باستخدام أطقم ELISA متخصصة وفقاً للإرشادات القياسية. ثم قِيست قيم الامتصاصية، وحُسبت مستويات المؤشرات الحيوية بناءً على منحنيات قياسية.
التلوين النسيجي والمناعي الفلوري
غُسلت أنسجة القلب التي تم جمعها في محلول كلوريد الصوديوم بتركيز 0.9% المبرد مسبقاً، ثم قُطعت على مسافة 5 mm فوق القمة، وطُمرت في البارافين. بعد ذلك، أُزيل البارافين من مقاطع الأنسجة وأُعيد ترطيبها. أُجري صبغ HE عن طريق تطبيق الهيماتوكسيلين لمدة 10 min، يليه الصبغ المضاد بالإيوسين لمدة 2.5 min. كما أُجري صبغ ماسون عن طريق تطبيق الهيماتوكسيلين لمدة 60 s وصبغة ماسون ثلاثية الألوان لمدة 30–60 s. ثم ميزت المقاطع في حمض الفوسفوريك بتركيز 6%–8% وصُبغت صبغاً مضاداً باللون الأخضر الفاتح لمدة 5 min. وتم قياس كسر حجم الكولاجين (CVF) لتقييم التليف العضلي القلبي.
ثُبِّتت أنسجة الدماغ التي تم جمعها في 4% paraformaldehyde، وجُففت في محلول سكروز متدرج التركيز، ثم قُطعت إلى شرائح بسمك 30 µm. ونظرًا لأن paraformaldehyde مادة سامة ويُشتبه في كونها مادة مسرطنة، فقد تم التعامل معها داخل خزانة استخلاص كيميائية مع ارتداء معدات الوقاية الشخصية المناسبة. عولجت الشرائح باستخدام محلول ساد (blocking buffer) يحتوي على 0.5% Triton X-100 و3% bovine serum albumin، ثم حُضنت طوال الليل عند 4 °C مع جسم مضاد أولي ضد c-Fos. بعد ذلك، غُسلت الشرائح بمحلول phosphate-buffered saline وحُضنت مع الأجسام المضادة الثانوية المقابلة لمدة 2 h في درجة حرارة الغرفة وفي الظلام. ثُبِّتت المقاطع باستخدام محلول إخماد الفلورة يحتوي على 4',6-diamidino-2-phenylindole (DAPI)، ثم صُوِّرت العصبونات الموجبة لـ c-Fos.
الفيزيولوجيا الكهربائية في الجسم الحي
تم تخدير الجرذان باستخدام الإيزوفلورين بنسبة 3% للحث و1% للحفاظ على التخدير، ثم تم تثبيتها في جهاز التوجيه المجسم للدماغ. حُلقت فروة الرأس وعُقمت، ثم أُجري شق في الخط الناصف للكشف عن منطقة البريغما (Bregma)، وأُزيلت الأم الجافية. حُفر ثقب في الجمجمة بدقة فوق منطقة NTS بناءً على الإحداثيات المجسمة التالية بالنسبة لنقطة البريغما (Bregma): الأمامي الخلفي (AP) ±12.6 mm، والإنسي الوحشي (ML) ±0.9–2.1 mm، والظهري البطني (DV) ±7.6–8.1 mm.
بعد الانتهاء من التسجيلات الفيزيولوجية الكهربائية، تم التحقق من التموضع المجسم الدقيق لطرف القطب الكهربائي. تم تطبيق تيار مستمر بقدر 1 mA لفترة وجيزة مدتها 10 s على قطب التسجيل لإحداث آفة تحليل كهربائي صغيرة. وفي مرحلة ما بعد التجربة، تم تقطيع جذع الدماغ، وتم التأكد نسيجياً من أن مسار الآفة يتوضع تشريحياً ضمن NTS.
تم زرع مصفوفة أقطاب كهربائية دقيقة ثمانية القنوات (2 × 4) وتقديمها ببطء نحو المنطقة المستهدفة من الدماغ بمعدل 5 µm/s باستخدام مناور دقيق بمحرك. وبمجرد استقرار النشاط العصبي، تم الحصول على التسجيلات بشكل مستمر لمدة 400 s. واستُخدم نظام استحواذ متعدد القنوات لالتقاط تفريغات النبضات العصبية (المفلترة عند 150–8,000 Hz، ومعدل أخذ عينات 40 kHz) وجهود المجال المحلي (LFP؛ المفلترة عند 0.7–400 Hz، ومعدل أخذ عينات 1 kHz).
استُخدم برنامج فرز النبضات (Spike-sorting) لاستبعاد إشارات التداخل ذات السعة العالية والشوائب التقليدية عبر الارتباط المتقاطع لشكل الموجة. ثم أُجري تحليل الإشارات العصبية اللاحق باستخدام برنامج تحليل عصبي. وقد صُنفت العصبونات على أنها نشطة فقط عندما أظهرت معدل إطلاق تلقائي متوسط >2 Hz وحافظت على نسبة إشارة إلى ضوضاء مستقرة >3:1. وقد تم اختيار عتبة 2 Hz بناءً على الخصائص الفسيولوجية الراسخة للعصبونات المرتبطة بالجهاز الذاتي في النواة المنفردة (NTS)؛ حيث عملت هذه العتبة بفعالية على استبعاد الخلايا الصامتة في الغالب والاندفاعات الإيقاعية التنفسية منخفضة التردد، مما ضمن تركيز التحليل على العصبونات النشطة توترياً التي تتوسط التنظيم القلبي الوعائي الأساسي17,18,19,20. وبناءً على هذه المعايير، تم إنشاء مخططات Raster لتفريغ النبضات ومتوسط تردد الإطلاق العصبوني. كما تم إنشاء المخططات الطيفية للطاقة لجهد المجال المحلي (LFP) ثنائي الأبعاد وتضاريس كثافة القدرة الطيفية (PSD) ثلاثية الأبعاد لتقييم خصائص طاقة التذبذب العصبي.
بعد التسجيل، تم خياطة الشق الجراحي، ومراقبة الجرذان حتى تعافين تماماً من التخدير. تم إعطاء البنسلين عن طريق الحقن داخل الصفاق، كما تم إعطاء كاربروفين (5 mg/kg, s.c.) يومياً لمدة ثلاثة أيام متتالية.
تحليل البروتوميات الكمي باستخدام الاستحواذ المستقل عن البيانات
تم استخلاص البروتين الكلي باستخدام محلول تحليل خلوي (lysis buffer) وتقدير كميته بطريقة حمض البيسينكونينيك. ثم أُخضعت البروتينات للمسخ، ثم للمعالجة بالألكلة الاختزالية، وهُضمَت باستخدام تريبسين عند درجة حرارة 37 °C لمدة 2 h. بعد ذلك، تم إزالة الأملاح من الببتيدات الناتجة باستخدام عمود C18، ورُكزت عند درجة حرارة 45 °C، ثم أُعيد تعليقها لتحليلها لاحقاً بواسطة مطياف الكتلة.
تم تحميل الببتيدات على عمود حبس (5 µm C18, 300 µm x 5 mm) تمت موازنته باستخدام 96% من المحلول المنظم A (0.1% حمض الفورميك في الماء). وفُصلت الببتيدات عبر عمود تحليل كروماتوغرافي سائل عالي الأداء فائق السرعة وعالي الإنتاجية باستخدام تدرج تم تحسينه بدقة من المحلول المنظم A والمحلول المنظم B (0.1% حمض الفورميك في 80% أسيتونيتريل).
أُجري قياس الطيف الكتلي في وضع اكتساب البيانات المستقل عن الأيونات (DIA) للأيونات الموجبة بجهد رش كهربائي قدره 1.9 kV. وتم الحصول على عمليات مسح كاملة لمطياف الكتلة عبر نطاق كتلي من 380 إلى 980 m/z وبدقة تحليل قدرها 240,000، مع قيمة مستهدفة للتحكم التلقائي في الكسب (AGC) تبلغ 500% وأقصى زمن حقن قدره 3 ms. كما تم الحصول على أطياف MS/MS بدقة تحليل قدرها 80,000 (القيمة المستهدفة لـ AGC: 500%؛ أقصى زمن حقن: 3 ms؛ سعة عدسة RF: 40%). وجرى تفتيت الأيونات السليفة باستخدام التفكك التصادمي عالي الطاقة مع نافذة عزل قدرها 2 Th وطاقة تصادم معيارية تبلغ 25% ضمن زمن دورة محدد قدره 0.6 s.
تَمَّت معالجة بيانات مطيافية الكتلة الخام باستخدام برنامج DIA-NN. وأُنشئت مكتبة طيفية باستخدام خوارزمية التعلم العميق الداخلية، وطُبِّقت وظيفة المطابقة بين التشغيلات (match-between-runs) للقياس الكمي مقابل قاعدة بيانات البروتوم المرجعية لـ Rattus norvegicus، مع هضم بالتربسين وما يصل إلى 2 من عمليات الانقسام المفقودة. ثم صُفِّيت مصفوفة البروتين الكمية النهائية باستخدام عتبة صارمة لمعدل الاكتشاف الخاطئ بنسبة 1% على مستويي الأيون السلف والبروتين.
التحليل المعلوماتي الحيوي واستخراج الجينات المحورية
أُجريت تحليلات المعلوماتية الحيوية والتصورات البيانية للبيانات بشكل أساسي باستخدام بيئة البرمجة R إلى جانب برامج متخصصة في تصور الشبكات. ولضمان الشفافية المنهجية وقابلية التكرار، تم توفير جميع نصوص R البرمجية المخصصة المستخدمة طوال هذه العمليات التحليلية في الملف التكميلي 1 (Supplementary File 1). أُجريت عمليات ضبط جودة البيانات الأولية وتقييمات التوزيع العام باستخدام حزمة ropls. كما تم تجميع الإحصائيات العامة لتحديد وكمية البروتينات؛ وأُجري تحليل التمييز بالمربعات الصغرى الجزئية (PLS-DA) عبر المجموعات الثلاث؛ بينما أُجري تحليل التمييز بالمربعات الصغرى الجزئية المتعامد (OPLS-DA) للمقارنات الزوجية؛ وأُنشئت خرائط حرارية لارتباط العينات باستخدام حزمة pheatmap.
تَمّ فحص البروتينات الأساسية ذات التعبير التفاضلي باستخدام عتبات تشمل قيمة p-value <0.05، وتغير طي fold change >1.2، ودرجة أهمية المتغير في الإسقاط variable importance in projection score >1.0. كما تَمّ إنشاء مخططات بركان مزدوجة (Double volcano plots) باستخدام حزمة ggplot2، وتحديد التقاطعات باستخدام حزمة ggVennDiagram، ورسم خرائط حرارية للتجميع الهرمي باستخدام حزمة pheatmap لتصوير البروتينات المتقاطعة. وأُجريت تحليلات إثراء الوجود الجيني (GO) وموسوعة كيوتو للجينات والجينومات (KEGG) بشكل منفصل للبروتينات ذات التعبير المرتفع والمنخفض باستخدام حزمة enrichR بناءً على قاعدة بيانات Enrichr.
تم تعيين جميع البروتينات ذات التعبير المتباين في قاعدة بيانات STRING مع عتبة ثقة بلغت 0.4 لبناء شبكة التفاعل البروتيني-البروتيني. تم استيراد بيانات التفاعل إلى برنامج تصور الشبكات. واستُخدمت إضافة cytoHubba لحساب الدرجات الطوبولوجية، وتم استخراج أعلى 18 جيناً سجلت درجات مرتفعة بناءً على عمق لون العقدة. خضعت الجينات الـ 18 المرشحة لتكون محاور (hub candidates) لتحليل إثراء المسارات، واختيرت أبرز 10 بروتينات لتقييم مستويات تعبيرها عبر الأنسجة البشرية باستخدام قاعدة بيانات Genotype-Tissue Expression (GTEx). تم تحديد الجين المحوري الأكثر أهمية بناءً على مستويات التعبير في الدماغ البشري والدرجات الطوبولوجية للشبكة. كما استُخدم متصفح بيانات Cistrome للتنبؤ بعوامل النسخ والتحويرات الهستونية المصبّ (downstream) المرتبطة بهذا الجين المحوري المحدد.
لطخة وسترن وتفاعل البوليميراز المتسلسل الكمي
تم استخلاص البروتين الكلي من أنسجة NTS باستخدام خليط تحليل يحتوي على منظم تحليل فينيل ميثان سلفونيل فلوريد، وPMSF، ومثبطات الفوسفاتاز. وجرى تجانس العينات باستخدام جهاز تفتيت الخلايا بالموجات فوق الصوتية، ثم طردها مركزياً عند 13,800 x g لمدة 20 دقيقة عند 4 °C لجمع السوائل الطافية. كما تم تحديد تركيزات البروتين باستخدام طقم مقايسة حمض البيسينكونينينيك للبروتين. وفُصِل ما مجموعه 20 µg من البروتين من كل عينة عن طريق الرحلان الكهربائي لهلام بولي أكريلاميدهيدرات صوديوم دوديسيل كبريتات بنسبة 10%، ثم نُقِلت البروتينات لاحقاً إلى أغشية بولي فينيليدين فلوريد.
تم حجب الأغشية باستخدام حليب خالي الدسم بتركيز 5% في محلول Tris-buffered saline Tween (TBST) لمدة 1 h في درجة حرارة الغرفة، ثم حُضنت طوال الليل عند 4 °C مع أجسام مضادة أولية متخصصة تستهدف Yin Yang 1 (YY1) و β-actin كبروتين مرجعي (housekeeping protein). غُسلت الأغشية باستخدام TBST لمدة 5 min ثلاث مرات، ثم حُضنت مع جسم مضاد ثانوي مقترن ببيروكسيديز الفجل الحار لمدة 1.5 h في درجة حرارة الغرفة. وتم تصوير النطاقات المستهدفة باستخدام طقم تحسين التألق الكيميائي، والتقاط الصور بواسطة نظام تصوير، ثم تم قياسها كمياً بالنسبة لـ β-actin.
تم استخلاص RNA الكلي من أنسجة NTS باستخدام كاشف لاستخلاص RNA. وقِيس تركيز RNA ونقاوته باستخدام مقياس الطيف الضوئي، كما تم تخليق الشريط الأول من cDNA باستخدام مجموعة أدوات النسخ العكسي. أُجري تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (PCR) باستخدام مجموعة SYBR Green PCR على نظام PCR في الوقت الحقيقي. وكانت تسلسلات البادئات المحددة المستخدمة للتضخيم، إلى جانب أرقام وصول تسلسل المرجع الخاصة بها في NCBI، كما يلي: YY1 (NM_001002271.1)، البادئ الأمامي 5'-AGCGTTCGTTGAGAGCTCAA-3' والبادئ العكسي 5'-AGCCTTCGAATGTGCACTGA-3'؛ و DPF2 (NM_001014264.1)، البادئ الأمامي 5'-TGTGATGACTGTGACCGTGG-3' والبادئ العكسي 5'-TCCAAACACAGGTGGCAACT-3'؛ و DMAP1 (NM_001007705.1)، البادئ الأمامي 5'-GGTGTGACATTACGGAGCCA-3' والبادئ العكسي 5'-TCCAGCAGCATCTGTTCCAG-3'؛ و glyceraldehyde-3-phosphate dehydrogenase (GAPDH) (NM_017008.4)، البادئ الأمامي 5'-GGCACAGTCAAGGCTGAGAATG-3' والبادئ العكسي 5'-ATGGTGGTGAAGACGCCAGTA-3'. حُسبت مستويات التعبير النسبي لـ mRNA باستخدام طريقة 2-ΔΔCt وجرى تقييسها مقابل الجين المرجعي الداخلي GAPDH.
التحليل الإحصائي
تم تحليل جميع البيانات التجريبية باستخدام برنامج إحصائي وعُرضت في شكل المتوسط ± الانحراف المعياري (SD). كما تم تقييم التوزيع الطبيعي باستخدام اختبار Shapiro-Wilk، وتقييم تجانس التباين باستخدام اختبار Brown-Forsythe.
لإجراء المقارنات بين مجموعتين مستقلتين، استُخدم اختبار t للطلاب (Student's t-test) أو اختبار t للمجموعات المقترنة للبيانات التي استوفت معايير التوزيع الطبيعي. أما البيانات التي لم تستوفِ افتراضات التوزيع الطبيعي، فقد حُللت باستخدام اختبار مان-ويتني U (Mann-Whitney U test) أو اختبار ويلكوكسون للرتب الموقعة (Wilcoxon signed-rank test). وللمقارنات بين مجموعات متعددة، استُخدم تحليل التباين أحادي الاتجاه، متبوعاً باختبار هولم-سيداك (Holm-Sidak) للمقارنات البعدية، وذلك عند استيفاء افتراضات التوزيع الطبيعي والتجانس. واستُخدم اختبار كروكسال-واليس H (Kruskal-Wallis H test)، متبوعاً باختبار دان (Dunn) للمقارنات البعدية، عندما لم يتم استيفاء هذه الافتراضات.
تم تقييم الارتباطات باستخدام معامل ارتباط بيرسون الذي تم حسابه بواسطة حزمة Hmisc في برنامج R. وجرى تعديل قيم p المقابلة باستخدام طريقة بنجاميني-هوكبيرج لمعدل الاكتشاف الكاذب عبر حزمة stats للتحكم في ارتفاع معدل الخطأ من النوع الأول الناتج عن الاختبارات المتعددة. كما حُدد مستوى الدلالة الإحصائية العامة عند p <0.05.
النتائج
الوخز الإبري الكهربائي يحسن وظيفة القلب ويخفف من إصابة عضلة القلب في جرذان تعاني من فشل القلب المزمن
لتقييم تأثيرات EA على CHF، تم إنشاء نموذج الجرذ عن طريق ربط الشريان التاجي LAD، متبوعاً بتدخلات EA محددة أو Sham EA. وقد أُجريت تقييمات منهجية، شملت تخطيط صدى القلب، والمقايسات الكيميائية الحيوية، والتلوين النسيجي (الشكل 2A). ومن الناحية الوظيفية، أظهرت مجموعة CHF توسعاً بطينياً وضعفاً في القدرة الانقباضية. وقد أدى علاج EA إلى تحسين الانخفاضات في LVEF وLVFS الملحوظة في جرذان CHF، بينما أظهرت مجموعة Sham EA مستويات وظائف قلبية مماثلة لتلك الموجودة في مجموعة CHF (الشكل 2B و الشكل 2C).
علاوة على ذلك، خفض الوخز الإبري (EA) مستويات NT-proBNP وcTnT في المصل، مما يشير إلى تقليل العبء القلبي وتخفيف إصابة عضلة القلب. وفي المقابل، أظهرت مجموعة الوخز الإبري الوهمي (Sham EA) معايير كيميائية حيوية مشابهة لتلك الموجودة في مجموعة قصور القلب الاحتقاني (CHF) (الشكل 2E,F). وأظهر التحليل النسيجي أن مجموعة CHF عانت من تلف هيكلي في عضلة القلب وتليف. وقد أدى العلاج بالوخز الإبري (EA) إلى تحسين بنية عضلة القلب وتقليل حجم التليف القلبي الوعائي (CVF)، بينما احتفظت مجموعة الوخز الإبري الوهمي (Sham EA) بالتغيرات المرضية ومستويات CVF المماثلة لتلك الموجودة في مجموعة CHF (الشكل 2D). وبشكل عام، أظهر الوخز الإبري (EA) تأثيرات واقية للقلب ضد قصور القلب الاحتقاني (CHF)، في حين أن تدخل الوخز الإبري الوهمي (Sham EA) لم ينتج عنه نتائج علاجية مماثلة.
الوخز الإبري الكهربائي ينشط الخلايا العصبية في النواة solitary tractus لدى الجرذان المصابة بفشل القلب المزمن
لتحديد ما إذا كانت النواة الشوكية المنفردة (NTS) تتوسط الاستجابة المركزية لعلاج الوخز الإبري الكهربائي (EA)، تم تقييم التنشيط العصبي عن طريق صبغ c-Fos، وهو علامة على الاستثارة العصبية. وأظهر التصوير المناعي الفلوري (الشكل 3A) والتعداد الكمي للخلايا (الشكل 3B) أن عدد العصبونات الموجبة لـ c-Fos في النواة الشوكية المنفردة كان أقل في مجموعة فشل القلب الاحتقاني (CHF) مقارنة بمجموعة التحكم (Sham). ومع ذلك، أدى علاج الوخز الإبري الكهربائي إلى زيادة تعبير c-Fos إلى مستويات مماثلة لمستوى الأساس في مجموعة التحكم. وبالتوازي مع النتائج الوظيفية الطرفية، أظهرت مجموعة الوخز الإبري الكهربائي الوهمي (Sham EA) مستويات تعبير c-Fos مماثلة لتلك الموجودة في مجموعة فشل القلب الاحتقاني.
لتقييم الحالة الوظيفية لهذه العصبونات في النواة المفردة (NTS)، تم تسجيل الإشارات الفيزيولوجية الكهربائية في الجسم الحي. وقد تطابقت آثار تفريغ النبضات (الشكل 3C) ومتوسط معدل الوميض الكمي (الشكل 3D) مع النتائج النسيجية. حيث انخفض تردد الوميض التلقائي لعصبونات NTS في ظل ظروف فشل القلب الاحتقاني (CHF). وفي المقابل، أدى التدخل بالوخز بالإبر الكهربائي (EA) إلى رفع معدل الوميض العصبي، بينما لم يؤدِ إجراء الوخز الكهربائي الوهمي (Sham EA) إلى حدوث مثل هذه التغيرات الفيزيولوجية الكهربائية.
وقد تم دعم هذا النمط من التنشيط العصبي من خلال تحليل جهد المجال المحلي. وكما هو موضح في المخططات الطيفية الملونة لجهد المجال المحلي ثنائية الأبعاد (2D LFP) وخرائط كثافة القدرة الطيفية ثلاثية الأبعاد (الشكل 3E)، فقد انخفضت طاقة التذبذب العصبي داخل النواة العجوزية الجارعة (NTS) خلال حالة فشل القلب الاحتقاني (CHF). وبعد العلاج بالوخز الكهربائي (EA)، حدثت زيادة في كثافة القدرة عبر الطيف الترددي العصبي، مما يشير إلى تنشيط الشبكة، وهو الأمر الذي كان غائباً في مجموعة الوخز الكهربائي الوهمي (Sham EA).
لفحص الصلة الفسيولوجية لهذا التنشيط المركزي، تم إجراء تحليل ارتباط بيرسون، مع دمج المقاييس القلبية الطرفية مع النشاط العصبي المركزي للنواة solitary (NTS) (الشكل 3F). أظهر التحليل أن متوسط معدل الإطلاق وتعبير c-Fos داخل NTS كانا مرتبطين إيجابياً مع LVEF. وعلى العكس من ذلك، أظهرت مؤشرات النشاط العصبي المركزي هذه ارتباطاً سلبياً مع NT-proBNP، وهو مؤشر فشل القلب في المصل. وتشير هذه الارتباطات إلى أن التنشيط العصبي لـ NTS الذي يتم تنظيمه بواسطة EA مرتبط بفعاليته الطرفية في حماية القلب.
الوخز الإبري الكهربائي يغير الملف البروتيني الشامل في النواة السبيلية الوحيدة
نظراً لغياب الفعالية العلاجية الملحوظة في مجموعة الوخز الإبري الوهمي (Sham EA) خلال التقييمات الوظيفية السابقة، شملت مرحلة تحليل البروتينات مجموعات الوهم (Sham)، وفشل القلب الاحتقاني (CHF)، والوخز الإبري (EA) فقط. وقبل جمع الأنسجة، خضع 12 جرذًا من كل مجموعة لتقييم تخطيط صدى القلب لتقييم التأثيرات العلاجية للوخز الإبري، وقد عُرضت هذه النتائج في الشكل التكميلي 1-أوبعد هذا التقييم، خضعت 6 مكررات بيولوجية من كل مجموعة لتحليل بروتيومي كمي قائم على مطيافية الكتلة.
أُجريت عمليات مراقبة الجودة والتحليلات متعددة المتغيرات لتقييم موثوقية والتوزيع العام لبيانات البروتيوميات. بلغ العدد الإجمالي للبروتينات المحددة 5,914 في مجموعة Sham، و5,980 في مجموعة CHF، و5,836 في مجموعة EA، مما يشير إلى تماثل في الكشف عن البروتينات عبر المجموعات التجريبية الثلاث (الشكل 4A و الجدول التكميلي 1). وأظهر تحليل المربعات الصغرى الجزئية التمييزي انفصالاً واضحاً بين مجموعات Sham وCHF وEA، مما يشير إلى وجود ملفات بروتيومية عالمية متميزة مرتبطة بالحالة المرضية والتدخل بـ EA (الشكل 4B).
أظهر تحليل المربعات الصغرى الجزئية التمييزي المتعامد الزوجي (Pairwise orthogonal partial least squares discriminant analysis) بشكل أكبر وجود انفصال بين مجموعتي Sham وCHF (الشكل 4C) وبين مجموعتي CHF وEA (الشكل 4D). وقد دعمت اختبارات التبديل (permutation tests) المقابلة موثوقية النماذج المعنية. بالإضافة إلى ذلك، أظهرت الخريطة الحرارية لارتباط بيرسون (Pearson correlation heatmap) ارتباطات عالية داخل المجموعة الواحدة وأنماطاً متميزة بين المجموعات المختلفة في عينات البروتوميات، مما يدعم قابلية تكرار المكررات البيولوجية (الشكل 4E). وبشكل جماعي، أشارت تحليلات مراقبة الجودة والتحليلات متعددة المتغيرات هذه إلى أن مجموعة بيانات البروتوميات كانت قوية بما يكفي لعمليات التحديد والتحليل المعلوماتي الحيوي اللاحقة للبروتينات ذات التعبير المتباين.
الوخز بالإبر الكهربائية يعدل البروتينات الأساسية ذات التعبير المتباين ومسارات التأشير في النواة السبخية الوحيدة
لاستكشاف الأهداف الجزيئية للتحفيز الكهربائي بالإبر (EA)، تم تحليل التغيرات البروتينية. وأظهرت مخططات البركان توزيع البروتينات التي زاد تعبيرها والبروتينات التي انخفض تعبيرها في مقارنات مجموعة Sham مقابل مجموعة CHF، ومجموعة CHF مقابل مجموعة EA (الشكل 5A، والجدول التكميلي 2، والجدول التكميلي 3). ولتحديد الأهداف العلاجية، تم إجراء تحليل تقاطع. وكما هو موضح في مخططات فين، تم تحديد 58 بروتيناً زاد تعبيرها في مجموعة CHF ولكنها انخفضت بعد العلاج بـ EA، إلى جانب 27 بروتيناً انخفض تعبيرها في مجموعة CHF وزادت بفعل تدخل EA (الشكل 5B والجدول التكميلي 4). وقد أسفر هذا الفرز عن إجمالي 85 بروتيناً أساسياً متباين التعبير. وأظهرت خريطة التجميع الهرمية الحرارية أن تدخل EA قد عدّل أنماط التعبير غير الطبيعية لهذه البروتينات الـ 85، مما أدى إلى تحويل ملامحها نحو خط الأساس في مجموعة Sham (الشكل 5C).
لتحديد الوظائف البيولوجية لهذه الأهداف الجوهرية، أُجري تحليلا إثراء GO وKEGG بشكل منفصل للمجموعتين الفرعيتين المتميزتين من البروتينات. وبالنسبة للمجموعة الفرعية المكونة من 58 بروتيناً والتي خفض EA من تعبيرها، أظهر مخطط الفقاعات لـ GO إثراءً معنوياً في العمليات البيولوجية، بما في ذلك تنظيم المصفوفة خارج الخلوية وتنظيم البنية خارج الخلوية، إلى جانب المكونات الخلوية مثل البنية الغلافيّة الخارجية وثلاثي كولاجين، والوظائف الجزيئية، بما في ذلك الارتباط بالكولاجين والارتباط بمستقبل الغلوتامات (الشكل 5D و الجدول التكميلي 5). وكشف تحليل مسارات KEGG اللاحق، والذي تم تصويره باستخدام مخططات الروابط (chord diagrams) ومخططات سانكي (Sankey diagrams)، أن هذه البروتينات البالغ عددها 58 تشارك في شلالات تشمل هضم البروتين وامتصاصه، والهيكل الخلوي في الخلايا العضلية، وTGF-β مسار التأشير (الشكل 5هـ و الجدول التكميلي 6سلطت هذه التصورات الطوبولوجية الضوء على بروتينات محددة، بما في ذلك COL3A1 وCOL14A1 وMYH11 وDCN وDPF2، باعتبارها عُقداً بارزة تربط بين مسارات مرضية متعددة.
وفي المقابل، أُجري التوصيف الوظيفي للمجموعة الفرعية المكونة من 27 بروتيناً والتي زاد تعبيرها نتيجة تدخل الوخز بالإبر الكهربائية (EA). وقد أشار تحليل إثراء الوجود الجيني (GO) إلى المشاركة في عمليات بيولوجية مثل تنظيم نمو الخلايا والتنظيم الإيجابي لاستطالة النسخ المعتمد على قالب DNA، بالإضافة إلى وظائف جزيئية تشمل ربط البروتين المعتمد على الكالسيوم وربط رباعي البيرول (الشكل 5F و الجدول التكميلي 7). وقد قامت مخططات KEGG الوترية ومخططات سانكي المقابلة بربط هذه البروتينات بمسارات حيوية، بما في ذلك إعادة تشكيل الكروماتين المعتمدة على ATP والمعقد القمعي بولي كومب (الشكل 5G و الجدول التكميلي 8ومن الجدير بالذكر أن رسم خرائط هذه الشبكة قد عزل بروتينات رئيسية مثل YY1 وE2F2 وENTPD5، مما أوجد رابطاً بين شبكات التأشير المركزية هذه. وقد وضع هذا التصنيف الوظيفي الشامل الأساس الهيكلي لعملية التحقق اللاحقة من الأهداف الأساسية.
تحديد YY1 كهدف مرشح مرتبط بتأثيرات تدخل الوخز بالإبر الكهربائي من خلال توبولوجيا الشبكة وتوصيف التعبير الجيني
لتحديد الجين المحوري من بين البروتينات الـ 85 ذات التعبير التفاضلي، تم إنشاء شبكة تفاعل بروتين-بروتين. وقد حدد التحليل الطوبولوجي 18 عقدة ذات درجات اتصال عالية (الشكل 6A و الجدول التكميلي 9). وبالتبعية، أُجري تحليل مسارات KEGG خصيصاً لهذه البروتينات المحورية الـ 18. ورسمت مخططات الوتر وسانكي المقابلة العلاقات المعقدة بين هذه المحاور وشلالات التأشير المثرية، بما في ذلك إعادة تشكيل الكروماتين المعتمدة على ATP، والمعقد القمعي بولي كومب، وTGF-β مسار تأشير (الشكل 6A و الجدول التكميلي 10بناءً على هذا التوصيف الوظيفي، تم اختيار البروتينات العشرة الأكثر إثراءً بوضوح لإجراء مزيد من الفحص. ونظراً لأن الهدف العلاجي لمرض EA يقع في الجهاز العصبي المركزي، فقد تم تقييم هذه المرشحات العشرة باستخدام قاعدة بيانات GTEx للتعبير النسيجي البشري (الشكل 6ب و الشكل التكميلي 1ب-ي). وقد أشارت النتائج إلى أن YY1 فقط (الشكل 6B)، DMAP1(الشكل التكميلي 1ج)، و DPF2 (الشكل التكميلي 1-دتم التعبير عنها في أنسجة الدماغ.
لعزل الهدف المرشح الأكثر استجابة للتحفيز الكهربائي للإبر (EA)، أُجريت تجارب جزيئية في الجسم الحي باستخدام أنسجة النواة المنعزلة (NTS). استُخدم تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (Quantitative real-time PCR) لتقييم الاستجابة النسخية للمرشحات الثلاثة الغنية في الدماغ. وقد انخفض التعبير عن mRNA الخاص بـ YY1 في حالات فشل القلب الاحتقاني (CHF) وارتفع بعد العلاج بـ EA، بينما لم تظهر مستويات التعبير عن mRNA لكل من DPF2 وDMAP1 أي تغيرات ذات دلالة إحصائية عبر المجموعات التجريبية (الشكل 6C). وقد استبعد هذا الفحص النسخي DPF2 وDMAP1 من عمليات التحقق اللاحقة، وأيد أن YY1 هو المرشح الأساسي المستجيب. وأشار تحليل لطخة ويسترن (Western blot) اللاحق إلى أن مستويات بروتين YY1 انخفضت في مجموعة CHF مقارنة بمجموعة Sham المرجعية، بينما عاكس تدخل EA هذا الاتجاه، مما أدى إلى زيادة التعبير عن بروتين YY1 (الشكل 6D والشكل 6E). وتشير هذه النتائج التجريبية إلى أن EA يزيد من تنظيم تعبير YY1 داخل NTS.
لبحث الآليات التنظيمية العليا التي تتحكم في تعبير YY1، تم تحليل تعديلات الهيستون وعوامل النسخ المرتبطة به. ومن المهم ملاحظة أن هذه النتائج تستند حصرياً إلى تنبؤات المعلوماتية الحيوية الحاسوبية المستمدة من متصفح بيانات Cistrome ولا تمثل تحققاً تجريبياً مباشراً بواسطة ChIP-seq. وقد سلط التنبؤ فوق الجيني الضوء على تعديلات الهيستون، بما في ذلك H3K27ac و H3K27me3 و H3K4me3، مع درجات إمكانية تنظيمية عالية لموقع YY1 (الشكل 6F). وبالتزامن مع ذلك، حدد تسجيل الإمكانية التنظيمية عوامل نسخ مثل CDK9 و PRDM1 و ELL2 كمنظمات عليا لـ YY1 (الشكل 6G). وتحدد تنبؤات المعلوماتية الحيوية هذه الشبكات فوق الجينية والنسخية المحتملة التي تتحكم في تعبير YY1 في NTS.
باختصار، تثبت البيانات المقدمة أن التدخل باستخدام التحفيز الكهربائي بالإبر (EA) يحسن بفعالية وظائف القلب الجهازية ويخفف من إصابة عضلة القلب في جرذان قصور القلب الاحتقاني (CHF). وتصاحب هذه التأثيرات الواقية للقلب في الجهاز المحيطي عملية استعادة نشاط إطلاق السيالات العصبية والطاقة التذبذبية العصبية داخل النواة المنعزلة (NTS) مركزياً. علاوة على ذلك، حدد الفحص البروتومي الكمي 85 بروتيناً أساسياً متباين التعبير، وسلّط الضوء على عامل النسخ YY1 كهدف مرشح عالي الاستجابة. وإجمالاً، تشير هذه النتائج إلى أن الفعالية العلاجية للتحفيز الكهربائي بالإبر ضد قصور القلب الاحتقاني ترتبط ارتباطاً وثيقاً باستعادة الوظيفة العصبية للنواة المنعزلة، وأن زيادة تنظيم YY1 قد تكون مشاركة في هذه العملية البيولوجية العصبية المركزية.
توفر البيانات
تتضمن المخطوطة والملف التكميلي 1 جميع البيانات التي تم إنتاجها وتحليلها لدعم نتائج هذه الدراسة. والامتثالاً لمتطلبات إتاحة البيانات للجمهور، تم إيداع جميع البيانات الخام المتاحة التي استند إليها هذا البحث في مستودع Zenodo العام، ويمكن الوصول إليها بحرية عبر الرابط التالي: https://doi.org/10.5281/zenodo.22030720. كما تتوفر بيانات داعمة إضافية من المؤلفين المسؤولين بناءً على طلب مبرر.
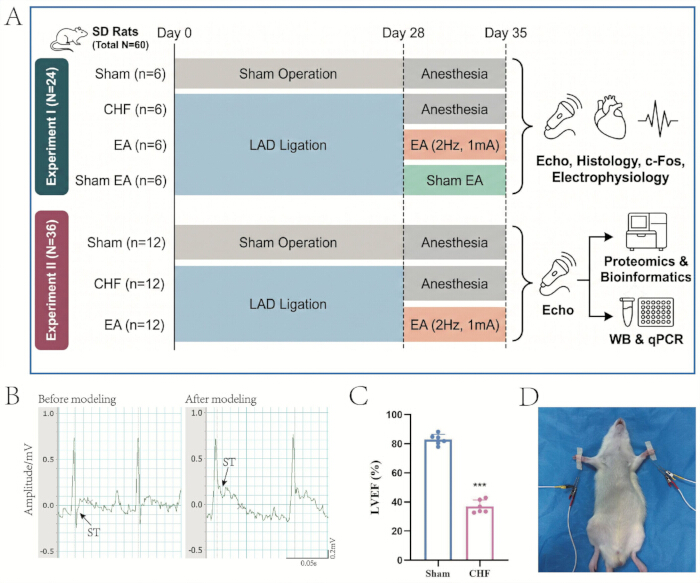
الشكل 1: التصميم التجريبي، وإنشاء نموذج جرذات فشل القلب المزمن، وتدخل الوخز الإبري الكهربائي. (A) المخطط الانسيابي التجريبي العام، بما في ذلك الجدول الزمني وتوزيع المجموعات للسلسلتين التجريبيتين المستقلتين. (B) تسجيلات ممثلة لتخطيط كهربائية القلب قبل وبعد ربط الشريان التاجي LAD، حيث تشير الأسهم إلى ارتفاع قطعة ST مما يؤكد حدوث نقص تروية عضلة القلب. (C) تحليل كمي للـ LVEF بعد 4 أسابيع من الجراحة للتأكد من نجاح إنشاء النموذج (المكررات البيولوجية n = 6، المتوسط ± SD). ***p < 0.001 مقابل مجموعة Sham. (D) تدخل EA عند نقاط الوخز HT7 في الجانبين. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
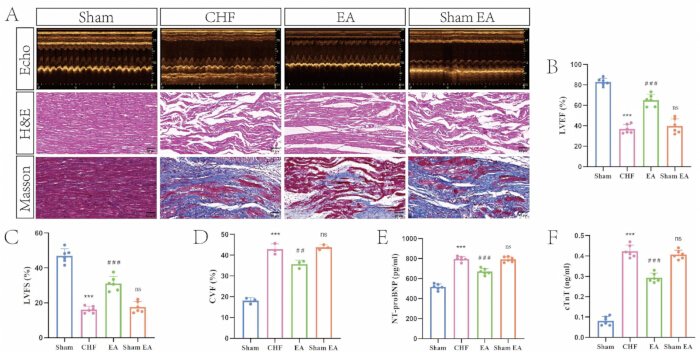
الشكل 2: يعمل الوخز الإبري الكهربائي على تحسين وظائف القلب وتخفيف إصابة عضلة القلب في الجرذان المصابة بفشل القلب المزمن. (A) مخططات صدى القلب بوضع M-mode ممثلة إلى جانب صور صبغ الهيماتوكسيلين والإيوزين وصبغ ماسون ترايكروم لأنسجة عضلة القلب عبر المجموعات التجريبية الأربع (شريط المقياس = 50 µm). (B) التحليل الكمي لـ LVEF عبر المجموعات (المكررات البيولوجية n = 6، المتوسط ± SD). ***p < 0.001 مقابل مجموعة Sham؛ ###p < 0.001 مقابل مجموعة CHF؛ ns، غير دال إحصائياً مقابل مجموعة CHF. (C) التحليل الكمي لـ LVFS عبر المجموعات (المكررات البيولوجية n = 6، المتوسط ± SD). ***p < 0.001 مقابل مجموعة Sham؛ ###p < 0.001 مقابل مجموعة CHF؛ ns، غير دال إحصائياً مقابل مجموعة CHF. (D) التحليل الكمي لـ CVF عبر المجموعات (المكررات البيولوجية n = 3، المتوسط ± SD). ***p < 0.001 مقابل مجموعة Sham؛ ##p < 0.01 مقابل مجموعة CHF؛ ns، غير دال إحصائياً مقابل مجموعة CHF. (E) التحليل الكمي لمستويات NT-proBNP في المصل عبر المجموعات (المكررات البيولوجية n = 6، المتوسط ± SD). ***p < 0.001 مقابل مجموعة Sham؛ ###p < 0.001 مقابل مجموعة CHF؛ ns، غير دال إحصائياً مقابل مجموعة CHF. (F) التحليل الكمي لمستويات cTnT في المصل عبر المجموعات (المكررات البيولوجية n = 6، المتوسط ± SD). ***p < 0.001 مقابل مجموعة Sham؛ ###p < 0.001 مقابل مجموعة CHF؛ ns، غير دال إحصائياً مقابل مجموعة CHF. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
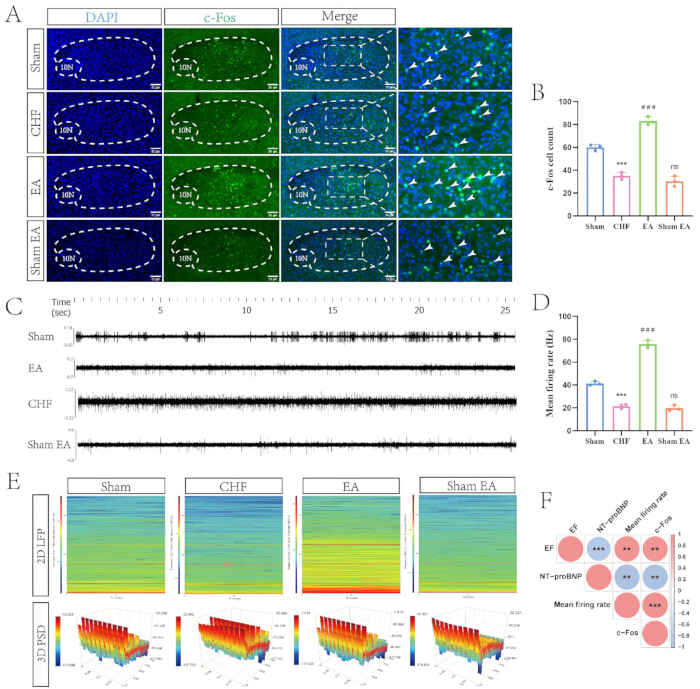
الشكل 3: الوخز الإبري الكهربائي يستعيد النشاط العصبي في النواة المفردة (NTS) لدى الجرذان المصابة بفشل القلب المزمن. (A) صور تمثيلية للتألق المناعي لتعبير c-Fos في الـ NTS عبر المجموعات. تم تلوين النوى بـ DAPI، بينما تظهر الخلايا الموجبة لـ c-Fos باللون الأخضر. تحدد الخطوط المتقطعة المنطقة التشريحية، وتشير رؤوس الأسهم البيضاء إلى عصبونات تمثيلية موجبة لـ c-Fos (شريط المقياس = 30 µm). (B) تحليل كمي لأعداد الخلايا الموجبة لـ c-Fos عبر المجموعات (مكررات بيولوجية n = 3، المتوسط ± الانحراف المعياري SD). ***p < 0.001 مقابل مجموعة Sham؛ ###p < 0.001 مقابل مجموعة CHF؛ ns، غير دال إحصائيًا مقابل مجموعة CHF. (C) آثار تمثيلية لتفريغ النبضات الكهرومغناطيسية في الجسم الحي (in vivo) للـ NTS عبر المجموعات. (D) تحليل كمي لمتوسط معدل إطلاق النبضات العصبية عبر المجموعات (مكررات بيولوجية n = 3، المتوسط ± الانحراف المعياري SD). ***p < 0.001 مقابل مجموعة Sham؛ ###p < 0.001 مقابل مجموعة CHF؛ ns، غير دال إحصائيًا مقابل مجموعة CHF. (E) مخططات طيفية ثنائية الأبعاد (2D) لجهد المجال المحلي وتضاريس كثافة الطيف القدراتي ثلاثية الأبعاد (3D) توضح طاقة التذبذب العصبي داخل الـ NTS. (F) مصفوفة ارتباط لتقييم العلاقات بين الأنماط الظاهرية القلبية الوعائية الطرفية ومعايير النشاط العصبي المركزي. تشير الدوائر الحمراء والزرقاء إلى الارتباطات الإيجابية والسلبية على التوالي. **p < 0.01؛ ***p < 0.001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
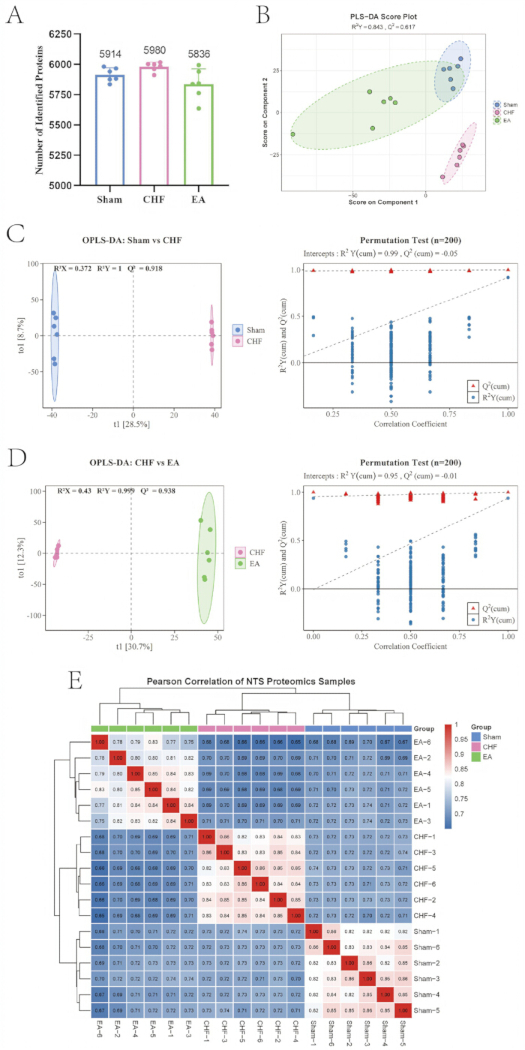
الشكل 4: مراقبة الجودة والتقييم الإحصائي متعدد المتغيرات للملفات البروتومية في النواة السبيلية المنعزلة. (A) نظرة عامة كمية على البروتينات المحددة عبر المجموعات التجريبية الثلاث (مكررات بيولوجية n = 6). (B) مخطط درجات تحليل التمييز بالمربعات الصغرى الجزئية الذي يوضح التوزيع المكاني العام والفصل بين المجموعات. (C) مخطط درجات تحليل التمييز بالمربعات الصغلى الجزئية المتعامدة واختبار التبديل المقابل للتحقق من موثوقية النموذج لمقارنة مجموعة Sham مقابل مجموعة CHF (200 تبديل). (D) مخطط درجات تحليل التمييز بالمربعات الصغرى الجزئية المتعامدة واختبار التبديل المقابل للتحقق من موثوقية النموذج لمقارنة مجموعة CHF مقابل مجموعة EA (200 تبديل). (E) خريطة حرارية للتجميع الهرمي لمعاملات ارتباط بيرسون لتقييم إمكانية التكرار داخل المجموعة والتباين بين المجموعات عبر جميع عينات البروتوميات. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
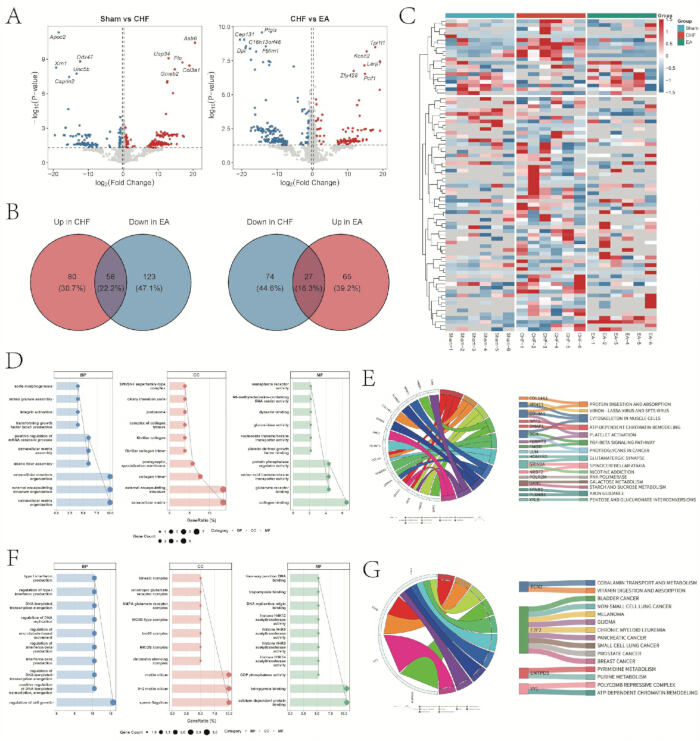
الشكل 5: تحديد وتحليل الإثراء الوظيفي للبروتينات الأساسية ذات التعبير التفاضلي التي تم تعديلها بواسطة الوخز الإبري الكهربائي في النواة السبيلية المنعزلة. (A) مخططات بركانية توضح توزيع البروتينات المرتفعة والمنخفضة التعبير في مقارنات Sham مقابل CHF وCHF مقابل EA. (B) مخططات فين التي ترسم تحليل التقاطع لتحديد البروتينات الأساسية المنخفضة والمرتفعة التعبير بعد تدخل EA. (C) خريطة حرارية للتجميع الهرمي لملفات تعبير البروتينات الأساسية ذات التعبير التفاضلي. (D) مخططات فقاعية لـ GO تفصل العمليات البيولوجية، والمكونات الخلوية، والوظائف الجزيئية المثرية لمجموعة البروتينات المنخفضة التعبير. (E) مخططات وتريات وسانكي لـ KEGG ترسم مسارات الإشارات المثرية بواسطة البروتينات المنخفضة التعبير. (F) مخططات فقاعية لـ GO تفصل العمليات البيولوجية، والمكونات الخلوية، والوظائف الجزيئية المثرية لمجموعة البروتينات المرتفعة التعبير. (G) مخططات وتريات وسانكي لـ KEGG ترسم مسارات الإشارات المثرية بواسطة البروتينات المرتفعة التعبير. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
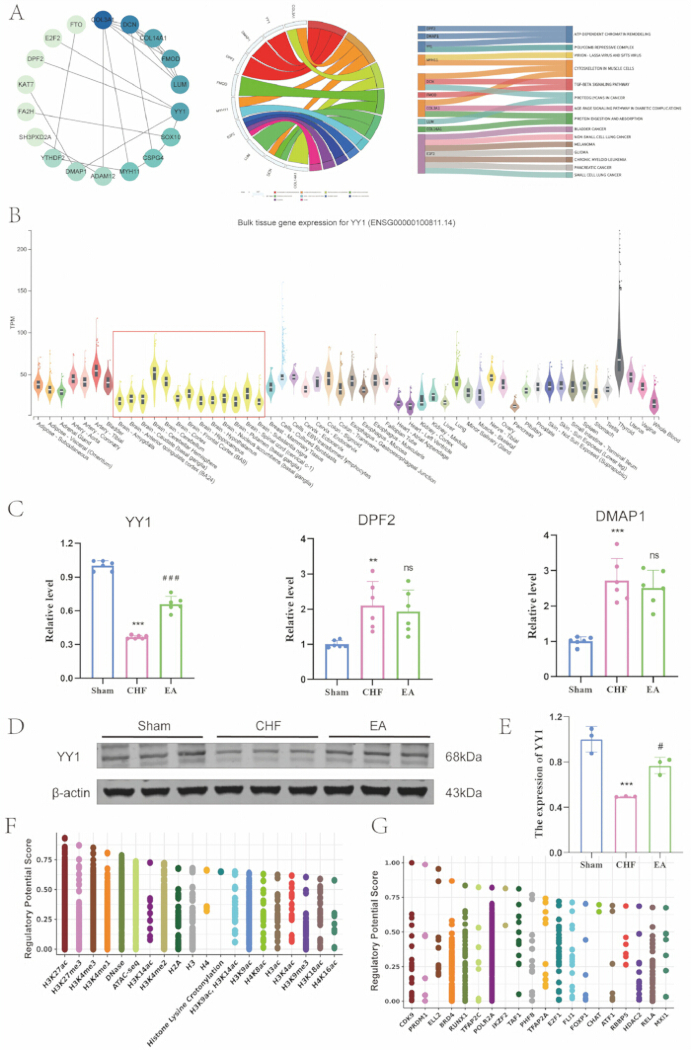
الشكل 6: يحدد طوبولوجيا الشبكة، وتوصيف التعبير النسيجي، والتحقق الجزيئي YY1 كهدف مرشح مرتبط بالوخز الكهربائي. (A) شبكة التفاعل بين البروتينات، ومخطط الوتر، ومخطط سانكي للبروتينات المركزية المحددة. (B) ملف تعريف التعبير النسيجي البشري لـ YY1 المستمد من قاعدة بيانات GTEx، حيث يبرز المربع الأحمر أنسجة الدماغ. (C) تحليل كمي للتعبير عن mRNA لكل من YY1 وDPF2 وDMAP1 في NTS عبر المجموعات (المكررات البيولوجية n = 6، المتوسط ± SD). **p < 0.01، ***p < 0.001 مقابل مجموعة Sham؛ ###p < 0.001 مقابل مجموعة CHF؛ ns، غير دال إحصائياً مقابل مجموعة CHF. (D) حزم لطخة ويسترن ممثلة لـ YY1 وβ-actin في NTS عبر المجموعات. (E) تحليل كمي للتعبير البروتيني لـ YY1 عبر المجموعات (المكررات البيولوجية n = 3، المتوسط ± SD). ***p < 0.001 مقابل مجموعة Sham؛ #p < 0.05 مقابل مجموعة CHF. (F) تنبؤ معلوماتي حيوي لتعديلات الهيستون فوق الجينية التي تنظم موقع YY1 بناءً على درجات القدرة التنظيمية. (G) تنبؤ معلوماتي حيوي لعوامل النسخ العلوية التي تنظم موقع YY1 بناءً على درجات القدرة التنظيمية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
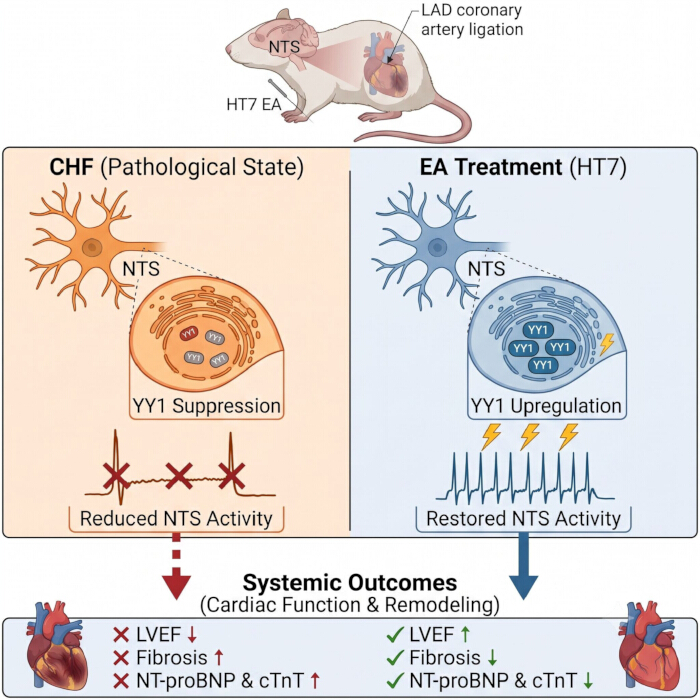
الشكل 7: النموذج المقترح للارتباط بين الوخز الإبري الكهربائي عند نقطة HT7، وزيادة تنظيم YY1، واستعادة النشاط العصبي في النواة السبيلية المنعزلة، وتحسن قصور القلب المزمن. (اليسار) الحالة المرضية: في نموذج CHF المستحث عن طريق ربط الشريان التاجي LAD، ينخفض النشاط العصبي داخل NTS، ويصاحب ذلك تثبيط عامل النسخ YY1. ويرتبط هذا التثبيط العصبي المركزي بإعادة تشكيل القلب المرضية، والتي تظهر في شكل انخفاض LVEF، وزيادة تليف عضلة القلب، وارتفاع علامات قصور القلب في المصل. (اليمين) علاج EA: يؤدي التدخل بـ EA عند نقطة الوخز HT7 إلى زيادة تنظيم تعبير YY1 في NTS واستعادة التدفق العصبي. ويحدث هذا التعديل العصبي المركزي تأثيرات واقية للقلب، مما يخفف من إعادة التشكيل المرضية ويحسن وظائف القلب الجهازية. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الشكل التكميلي 1: تقييم وظائف القلب للمجموعة البروتومية وملفات التعبير في الأنسجة البشرية للجينات المركزية المرشحة. (A) التحليل الكمي لـ LVEF و LVFS عبر المجموعات (المكررات البيولوجية n = 12، المتوسط ± الانحراف المعياري). ***p < 0.001 مقابل مجموعة Sham؛ ###p < 0.001 مقابل مجموعة CHF. (B-J) ملفات التعبير في الأنسجة البشرية للجينات المركزية المرشحة المستمدة من قاعدة بيانات GTEx وتشمل COL3A1 (B)، و DMAP1 (C)، و DPF2 (D)، و FMOD (E)، و MYH11 (F)، و E2F2 (G)، و LUM (H)، و DCN (I)، و COL14A1 (J).يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 1: مصفوفة التحديد والتقدير الكمي الشاملة للبروتوم العالمي في النواة السبيلية المنعزلة. يعرض هذا الجدول مجموعة بيانات البروتوميات الكمية الكاملة عبر جميع المجموعات التجريبية. تشمل الأعمدة الهامة معرف البروتين (رقم تسلسلي من UniProt)، والجين (رمز الجين)، ووصف البروتين الأول (التوصيف الوظيفي)، وقيم كثافة البروتين الموحدة لكل مكرر بيولوجي عبر مجموعات Sham وCHF وEA (العدد = 6 لكل مجموعة).يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 2: درجات أهمية المتغير في الإسقاط (VIP) لنموذج OPLS-DA للبروتينات في المقارنة بين مجموعة Sham ومجموعة CHF.يسرد هذا الجدول الميزات التي تميز بين مجموعتي Sham وCHF وفقاً لنموذج OPLS-DA. تشمل الأعمدة الرئيسية الميزة (التي تمثل معرف البروتين/الجين المحدد) وقيمة VIP_value (أهمية المتغير في الإسقاط)، والتي تشير إلى مساهمة كل ميزة في الفصل بين المجموعات (عتبة VIP > 1.0).يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 3: درجات أهمية المتغير في الإسقاط (VIP) لنموذج OPLS-DA للبروتينات في مقارنة فشل القلب الاحتقاني (CHF) مقابل الوخز بالإبر الكهربائي (EA). يسرد هذا الجدول السمات التي تميز مجموعتي CHF وEA بناءً على نموذج OPLS-DA. وعلى غرار الجدول S2، يتضمن الجدول عمود السمات وقيمة VIP_value المقابلة، مما يسلط الضوء على السمات الأكثر استجابة لتدخل الوخز بالإبر الكهربائي (EA).يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 4: قائمة مفصلة بـ 85 بروتيناً أساسياً متبايناً في التعبير تم تعديلها بواسطة الوخز الكهربائي. يوفر هذا الجدول تقاطع البروتينات التي تغيرت بشكل ملحوظ بسبب قصور القلب الاحتقاني (CHF) وتم عكسها لاحقاً من خلال تدخل الوخز الكهربائي (EA). وتشمل الأعمدة المهمة معرف البروتين (Protein_ID)، والجين (Gene)، و log2FC (تغير الطي اللوغاريتمي الذي يشير إلى تباين التعبير)، و P_value للدلالة الإحصائية (العتبة p < 0.05)، و VIP_value لتقييم المساهمة في النموذج.يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 5: تحليل إثراء الأنطولوجيا الجينية لمجموعة البروتينات الأساسية المنخفضة التعبير. يعرض هذا الجدول التوصيف الوظيفي للأنطولوجيا الجينية (GO) لـ 58 بروتيناً انخفض تعبيرها بفعل EA. وتشمل الأعمدة الهامة ONTOLOGY (المصنفة إلى عملية بيولوجية [BP]، ومكون خلوي [CC]، ووظيفة جزيئية [MF])، والوصف الوظيفي، وp.adjust (قيمة p المعدلة للاختبارات المتعددة)، وgeneID، الذي يشير إلى الجينات المحددة المثرية في كل مصطلح.يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 6: تحليل إثراء مسارات موسوعة كيوتو للجينات والجينومات (KEGG) للمجموعة الفرعية من البروتينات الأساسية المنخفضة التعبير. يوضح هذا الجدول شلالات التأشير المثرية لـ 58 بروتيناً منخفض التعبير. وتشمل الأعمدة الرئيسية مصطلح المسار (pathway Term)، وقيمة p المعدلة التي تشير إلى الدلالة الإحصائية للإثراء، والجينات المتقاطعة المحددة المشاركة في كل مسار.يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 7: تحليل إثراء الوجود الجيني للمجموعة الفرعية من البروتينات الأساسية المرتفعة التنظيم. يعرض هذا الجدول التعليق التوضيحي الوظيفي للوجود الجيني (GO) لـ 27 بروتيناً ارتفع تنظيمها بفعل EA. إن التنسيق وتعريفات الأعمدة (ONTOLOGY [BP, CC, MF]، والوصف، وp.adjust، وgeneID) مطابقة لتلك المفصلة في الجدول S5.يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 8: تحليل إثراء المسارات في موسوعة كيوتو للجينات والجينومات (KEGG) للمجموعة الفرعية من البروتينات الأساسية ذات التعبير المرتفع. يوضح هذا الجدول شلالات الإشارات المثرية لـ 27 بروتيناً ذات تعبير مرتفع. وتعد الصيغة وتعاريف الأعمدة (المصطلح، وقيمة p المعدلة، والجينات) متطابقة مع تلك الموضحة بالتفصيل في الجدول S6.يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي 9: درجات الاتصال الطوبولوجي لـ 18 بروتيناً محورياً مشتقة من شبكة التفاعل بين البروتينات. يلخص هذا الجدول المعاملات الطوبولوجية للشبكة المستخدمة لتحديد الجينات المحورية الأساسية. وتشمل الأعمدة الرئيسية اسم الجين ومقاييس الشبكة المركزية مثل الدرجة (Degree)، والمركزية البينية (Betweenness Centrality)، والمركزية التقاربية (Closeness Centrality)، والتي تحدد كمياً الأهمية النسبية والاتصال لكل عقدة داخل الشبكة البيولوجية.يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي 10: تحليل إثراء مسارات موسوعة كيوتو للجينات والجينومات (KEGG) لبروتينات المحور الثمانية عشر في الشبكة. يعرض هذا الجدول مسارات التأشير المحددة التي تم إثراؤها حصرياً بواسطة بروتينات المحور الثمانية عشر المحددة. وتشمل الأعمدة الرئيسية مسمى المسار (Term)، وقيمة p المعدلة للدلالة الإحصائية، والجينات المقابلة التي تقود الإثراء الوظيفي.يرجى النقر هنا لتحميل هذا الملف.
الملف التكميلي 1: برمجيات R المستخدمة في تحليل البيانات والتصور وصور لطخات ويسترن غير المقصوصة.يحتوي الملف التكميلي على برمجيات R المستخدمة في تحليل ارتباط بيرسون، وإنشاء مخططات البركان المزدوجة وتحديد البروتينات ذات الانعكاس في EA، وتحليل إثراء الوجود الجيني (GO)، وإنشاء خريطة حرارية للتجميع الهرمي، وتصور إثراء موسوعة كيوتو للجينات والأجينومات (KEGG)، وتحليل التمييز بمربعات الصغرى الجزئية المتعامدة (OPLS-DA) واختبار التبديل، وتحليل التمييز بمربعات الصغرى الجزئية (PLS-DA)، وإنشاء خريطة حرارية لارتباط عينات البروتوميات، وتحليل مخطط فين.يرجى النقر هنا لتحميل هذا الملف.
المناقشة
بحثت الدراسة الحالية في الآليات المركزية للوخز الإبري الكهربائي (EA) عند نقطة HT7 في نموذج جرذان مصاب بفشل القلب الاحتقاني (CHF). وأشارت البيانات الفسيولوجية والنسيجية إلى أن الوخز الإبري الكهربائي أدى إلى تحسين الكسر القذفي للبطين الأيسر (LVEF) وتخفيف تليف عضلة القلب. وبالتوازي مع هذه التغيرات الطرفية، دعمت التسجيلات الفيزيولوجية الكهربائية الحية ورسم الخرائط العصبية أن الوخز الإبري الكهربائي استعاد معدلات إطلاق الخلايا العصبية داخل النواة المنفردة (NTS). ومن خلال البروتوميات القائمة على مطيافية الكتلة، تم رسم المخطط الجزيئي للنواة المنفردة، وتحديد 85 بروتيناً متبايناً في التعبير تم تعديل أنماط تعبيرها غير الطبيعية بواسطة التدخل. وعزل التحليل الطوبولوجي وتنميط التعبير النسيجي اللاحق عامل النسخ YY1 كهدف بيولوجي مرشح. وأشار التحقق الجزيئي إلى أن الوخز الإبري الكهربائي يزيد من تنظيم تعبير YY1. وتنشئ هذه النتائج شبكة جزيئية مركزية للوخز الإبري الكهربائي وتشير إلى أن YY1 يمثل هدفاً نيوروبيولوجياً محتملاً يربط التنظيم الذاتي المركزي بتحسن فشل القلب الاحتقاني. تم تلخيص الآليات المركزية الشاملة في الشكل 7.
تعمل النواة المفردة (NTS) كمركز تكامل للمنعكسات القلبية الوعائية المركزية والتنظيم الذاتي21,22. وفي سياق أمراض القلب والأوعية الدموية، يتضمن فشل القلب الاحتقاني (CHF) خللاً مستمراً في التوازن الذاتي يتميز بفرط نشاط الجهاز السمبثاوي وتراجع النشاط المبهمي23. وخلال التطور المرضي لهذه الحالة، تنخفض حساسية مستقبلات الضغط الطرفية، مما يقلل من المدخلات الواردة الاستثارية إلى النواة المفردة (NTS)24. وبالنتيجة، يؤدي هذا التبلد العصبي إلى انخفاض تنشيط النخاع المستطيل البطني الجانبي الذيلي، وما يتبع ذلك من فك تثبيط النخاع المستطيل البطني الجانبي المنقاري، مما يؤدي في النهاية إلى تدفق سمبثاوي مركزي مفرط25. وبالتوازي مع هذه الآليات، أشارت البيانات الكهروبيوكيميائية والنسيجية إلى انخفاض تردد الإطلاق التلقائي وتعبير بروتين c-Fos في عصبونات النواة المفردة (NTS) في حالة فشل القلب الاحتقاني (CHF). وكنهج للتعديل العصبي المستهدف، يُفترض نظرياً أن الإشارات الواردة الحسية الجسدية الناتجة عن التحفيز الكهربائي للإبر (EA) تنتقل عبر الأعصاب الطرفية إلى القرن الظهري للنخاع الشوكي ثم تصعد إلى بنيات جذع الدماغ، بما في ذلك النواة المفردة (NTS)26. وقد أظهرت النتائج أن تدخل التحفيز الكهربائي للإبر (EA) عند نقطة الوخز HT7 أدى إلى زيادة الطاقة التذبذبية العصبية واستعادة معدل إطلاق العصبونات في هذه المنطقة من الدماغ. ومن الناحية الفسيولوجية، يعمل استعادة النشاط العصبوني للنواة المفردة (NTS) على تسهيل تنشيط العصبونات البينية المثبطة في النخاع المستطيل، مما يؤدي إلى كبح العصبونات قبل الحركية السمبثاوية مفرطة النشاط، وفي الوقت ذاته تعزيز الإشارات الصادرة للجهاز نظير السمبثاوي27. وبربط هذه الآليات العصبية المركزية بالأنماط الظاهرية القلبية الوعائية الطرفية، دعم تحليل الارتباط أن هذا التنشيط العصبي المركزي ارتبط إيجابياً بالكسر القذفي للبطين الأيسر (LVEF) وارتبط سلبياً بمؤشر فشل القلب الطرفي NT-proBNP. وتشير هذه النتائج إلى أن التحفيز الكهربائي للإبر (EA) قد يمارس تأثيراته الواقية للقلب طرفياً عن طريق تخفيف التثبيط المرضي لعصبونات النواة المفردة (NTS) وتعزيز التوازن الذاتي المركزي.
لتوضيح المسارات الجزيئية الكامنة وراء هذا التعديل العصبي المركزي، تم تحليل المشهد البروتومي للنواة السبيلية المنفردة (NTS). وقد حدد تحليل البروتوميات القائم على مطيافية الكتلة 85 بروتينًا تأثرت أنماط تعبيرها بالتدخل. وكشف التصنيف الوظيفي أن مجموعة فرعية مكونة من 58 بروتينًا خفض التنويم الكهربائي (EA) من تعبيرها تشارك بشكل بارز في تنظيم المصفوفة خارج الخلوية ومسار إشارات عامل النمو التحويلي β. تشكل المصفوفة خارج الخلوية في الجهاز العصبي المركزي شبكة منظمة، بما في ذلك الشبكات المحيطة بالعصبونات التي تغلف النهايات التشابكية فيزيائيًا وتنظم التوازن الأيوني المحلي28. وفي ظل الإجهاد المرضي المزمن، مثل فشل القلب، يؤدي الترسيب غير الطبيعي للمصفوفة خارج الخلوية إلى خلق بيئة دقيقة مقيدة داخل جذع الدماغ29. ويعيق هذا إعادة التشكيل الهيكلي اللدونة الهيكلية التشابكية فيزيائيًا ويحافظ على الدوائر العصبية في حالة من فرط نشاط الجهاز السمبثاوي30. ومن خلال تعديل تعبير البروتينات الهيكلية، مثل COL3A1 و COL14A1 إلى جانب DCN، يقوم التنويم الكهربائي بإعادة تشكيل هذا الحاجز المرضي خارج الخلوي. وبالتزامن مع ذلك، فإن إثراء شلالات الإشارات ذات الصلة — المصنفة ضمن مسار KEGG "الهيكل الخلوي في الخلايا العضلية"، والذي يشير إلى تغيرات هيكلية عامة وتغيرات بوساطة الإنتغرين بدلاً من الإشارة إلى الوجود الفعلي للخلايا العضلية داخل NTS — يشير إلى أن التغيرات خارج الخلوية تنتقل إلى الحيز داخل الخلوي31. وتعمل إشارات نقل التحويل الميكانيكي هذه على استعادة الدوران الديناميكي للأشواك الشجيرية وتنظيم النقل التشابكي وكفاءته في قوس المنعكس الذاتي32.
بالإضافة إلى إعادة التنظيم الهيكلي خارج الخلوي، أشار التوصيف الوظيفي لـ 27 بروتينًا تم زيادة تنظيمها بفعل التدخل إلى مشاركة إعادة تشكيل الكروماتين المعتمدة على ATP. يتم الحفاظ على عدم التوازن المستمر في الجهاز العصبي اللاإرادي القلبي الوعائي من خلال قيود فوق جينية، حيث يحد الكروماتين المكثف من إمكانية الوصول إلى مناطق المحفز للجينات التي تنظم التثبيط العصبي33. تستخدم معقدات إعادة تشكيل الكروماتين المعتمدة على ATP الطاقة الناتجة عن تحلل ATP لإزاحة أو طرد النيوكليوسومات، مما يفتح المواقع الجينومية للنسخ النشط34. ويشير إثراء هذا المسار، إلى جانب التنظيم الإيجابي لاستطالة النسخ المعتمد على DNA، إلى أن EA يعمل على المستوى فوق الجيني لإعادة تشكيل الذاكرة النسخية المرتبطة بالمرض35. ويترجم الارتخاء الهيكلي للبيئة المجهرية خارج الخلوية إلى تعديلات فوق جينية نووية، مما يسهل النسخ المنسق لشبكات الجينات الواقية للأعصاب التي تربطها بروتينات رئيسية مثل YY1 وE2F236,37. ولعزل الهدف البيولوجي الذي يتوسط الفعالية العلاجية لـ EA بشكل منهجي، تم تطبيق استراتيجية فحص تدريجية. تم تصفية 85 بروتينًا متباين التعبير من خلال رسم الخرائط الشبكية الطوبولوجية وتحليل إثراء المسارات لتحديد 10 مرشحين بارزين كمراكز شبكية. وقد أكد توصيف التعبير النسيجي اللاحق أن YY1 وDPF2 فقط، إلى جانب DMAP1، يتم التعبير عنهم في أنسجة الدماغ البشري. كما أدى التحقق الجزيئي في الجسم الحي إلى استبعاد DPF2 وDMAP1 بسبب نقص الاستجابة النسخية، مما أكد أن YY1 هو هدف مرشح عالي الاستجابة. YY1 هو عامل نسخ بإصبع الزنك يفرض سيطرته على تطور الجهاز العصبي المركزي واللدونة العصبية38. وفي الدوائر العصبية الناضجة، يعمل YY1 كمنظم واقٍ للأعصاب من خلال الحفاظ على التوازن الميتوكوندري وتخفيف الإجهاد التأكسدي39. وأثناء التطور المرضي لفشل القلب الاحتقاني (CHF)، يؤدي الإجهاد الهيموديناميكي المستمر والالتهاب المحيطي إلى خلل وظيفي في التمثيل الغذائي وتلف هيكلي في عصبونات جذع الدماغ40. وأشارت البيانات التجريبية إلى أن التعبير عن YY1 يتم تثبيطه في NTS في ظل ظروف CHF، بينما عمل تدخل EA على مواجهة هذا التثبيط المرضي. وبناءً على تنبؤات المعلوماتية الحيوية الحاسوبية فقط وليس على التحقق التجريبي، يُفترض أن YY1 يتفاعل مع تعديلات الهيستون النشطة، مثل H3K27ac وH3K4me3، لتنظيم نسخ شبكات الجينات الواقية للأعصاب في المصب 41. وقد يسهل استعادة نشاط YY1 إصلاح مسارات التمثيل الغذائي العصبي وتعزيز السلامة الهيكلية للوصلات المشبكية. وبناءً على ذلك، تحسن عصبونات NTS المعدلة من قدرتها على معالجة مدخلات المنعكس الضغطي المحيطي وممارسة تحكم تثبيطي على مسارات ما قبل الحركية الودية النازلة، مما يحسن التدهور القلبي الوعائي المرتبط بـ CHF42.
وعلى الرغم من هذه الاكتشافات، فإن هناك العديد من القيود المنهجية التي تستدعي دراسة دقيقة. أولاً، اعتمد التصميم التجريبي الحالي على البيانات الأوميكية الارتباطية وتوصيف التعبير الجيني دون وجود دليل وظيفي مباشر. لذا، يجب أن تتضمن الاستقصاءات المستقبلية تدخلات جينية مستهدفة، مثل التثبيط أو التعبير المفرط بوساطة الناقلات الفيروسية داخل النواة المفردةات الصنوبرية (NTS)، إلى جانب استخدام تقنية ChIP-seq أو CUT التجريبية.&تتمثل الثغرة الأولى في الحاجة إلى إجراء مقايسات الوسم (Tag assays) لإثبات الدور السببي لبروتين YY1 بشكل قاطع والتحقق من شبكات التخلق المتوالي (epigenetic networks) المصبة له. ثانيًا، فإن استبعاد مجموعة الوهمي للوخز الكهربائي (Sham EA) من مرحلة التحليل البروتومي يحد من قدرتنا على استبعاد التوقيعات الجزيئية الناتجة عن التحفيز الحسي الجسدي غير المحدد بشكل قاطع. ومع ذلك، فإن مقارنة مجموعتي فشل القلب الاحتقاني (CHF) والوخز الكهربائي (EA) بالنسبة إلى الخط القاعدي للمجموعة الوهمية تعتبر كافية لعزل التغيرات الجزيئية الخاصة بالوخز الكهربائي في التصميم الحالي؛ وذلك لأن جميع المجموعات التي لم تخضع للتدخل، وتحديدًا مجموعتي الوهمي وCHF، خضعت لتوحيد صارم للخط القاعدي فيما يتعلق بالتعرض اليومي للتخدير باستخدام الإيزوفلوران، مما قلل بشكل فعال من أكثر المربكات إثارة للضغط العصبي غير المحدد. علاوة على ذلك، أظهرت بياناتنا الوظيفية الأولية أن الوخز الكهربائي الوهمي لم يسبب تنشيطًا قلبيًا وعائيًا أو عصبيًا ملحوظًا مقارنة بمجموعة CHF، مما يشير إلى أن التحفيز الحسي الجسدي السطحي بدون تيار كهربائي لا يصل إلى العتبة المطلوبة لإحداث إعادة برمجة جزيئية مركزية جوهرية. ثالثًا، تفتقر الدراسة إلى مجموعات ضابطة قياسية لنقاط غير متعلقة بالوخز، مما يمنع التأكيد القاطع على خصوصية نقطة الوخز HT7. بالإضافة إلى ذلك، تظل المسارات العصبية الواردة المقترحة من HT7 إلى النواة المفردة (NTS) تخمينية دون إجراء تتبع عصبي مباشر أو التحقق من خلال حصر الأعصاب. وأخيرًا، قيمت الفيزيولوجيا الكهربائية في الجسم الحي نشاط النواة المفردة العام في نقطة زمنية واحدة دون التمييز بين المجموعات العصبية الفرعية الاستثارية والتثبيطية المحددة، كما لم تقيم اللدونة العصبية طويلة المدى. ويجب أن تعالج الأبحاث اللاحقة هذه الثغرات الحرجة لتنقيح الآليات البيولوجية العصبية المركزية.
وفي الختام، ومن خلال دمج هذه النتائج مع الإقرار بطبيعتها الارتباطية، يوفر هذا البحث إطاراً جزيئياً قيماً يشير إلى أن EA يخفف من إعادة تشكيل القلب المرضية عن طريق استعادة وظيفة العصبونات في NTS. وتبرز هذه البيانات YY1 كهدف مرشح عالي الاستجابة للتعديل العصبي القلبي الوعائي المركزي، مما يقدم رؤى بيولوجية عصبية جديدة للتطبيق السريري للعلاج بالإبر في إدارة فشل القلب.
الإفصاحات
يقر جميع المؤلفين بعدم وجود أي تضارب في المصالح. كما يقر المؤلفون بعدم استخدام أي أدوات ذكاء اصطناعي في أي جزء من عملية إعداد المخطوطة.
شكر وتقدير
نود أن نعرب عن خالص امتناننا لجميع الباحثين الذين ساهموا في هذه الدراسة، ونقر باحترام بالتضحيات التي قدمتها الحيوانات التجريبية. تم دعم هذا العمل من قبل البرنامج الوطني الرئيسي للبحث والتطوير في الصين (منحة رقم 2022YFC3500500 و2022YFC3500502) وبرنامج دعم المواهب على مستوى جامعة Xu Nenggui (منحة رقم DT2400000222). لم يكن للممولين أي دور في تصميم الدراسة، أو جمع البيانات وتحليلها، أو قرار النشر، أو إعداد المخطوطة.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| ذكور جرذان Sprague-Dawley بالغة | شركة Liaoning Changsheng Biotechnology Co., Ltd. | رقم SCXK (LIAO) 2025-0001 | RGD_70508 |
| إبر الوخز بالإبر | شركة سوزو تيانكسي لأجهزة الوخز بالإبر المحدودة (Suzhou Tianxie Acupuncture Instrument Co., Ltd.) | — | — |
| وسط تثبيت مانع للبهتان مع DAPI | شركة Aibixin Biotechnology المحدودة | abs9235-25مل | — |
| الأجسام المضادة الأولية المضادة لبروتين YY1 | Proteintech Group, Inc | 66281-1-Ig | AB_2881664 |
| جسم مضاد أولي مضاد لـ Beta Actin | 66009-1-Ig | AB_2687938 | |
| ألبومين المصل البقري (BSA) | شركة سيجما أوديللي التجارية المحدودة (Sigma Odellie Trading Co., Ltd.) | V900933 | — |
| طقم تحليل بروتين BCA | شركة شنغهاي بييونتيان للتكنولوجيا الحيوية المحدودة (Shanghai Biyuntian Biotechnology Co., Ltd.) | P0012S | — |
| الأجسام المضادة أحادية النسيلة rabbit mAb لـ c-Fos (9F6) | شركة ساي شين تونغ للكواشف البيولوجية المحدودة (Sai Xin Tong Biological Reagents Co., Ltd.) | 2250S | AB_2247211 |
| سيتوسكيب (Cytoscape) | اتحاد سايتوسكيب (The Cytoscape Consortium) | الإصدار 3.2.1 | SCR_003032 |
| مزيج سيد qPCR الشامل ChamQ Universal SYBR | شركة Vazyme Biotech Co., Ltd. | Q711-02 | — |
| جهاز الوخز بالإبر الكهربائي | شركة نانجينغ جيسينج للتكنولوجيا الطبية المحدودة | HANS-200A | — |
| ثماني القنوات (2 × ٤) مصفوفة الأقطاب الكهربائية الدقيقة | شركة كيووا سوزو للتكنولوجيا الطبية المحدودة (Kewa Suzhou Medical Technology Co., Ltd.) | - | — |
| طقم مقايسة الممتز المطبق المناعي المرتبط بالإنزيم (NT-proBNP) | شركة ووهان للتقانة الحيوية المناعية الإنزيمية المحدودة (Wuhan Enzyme Immuno-Biotechnology Co., Ltd.) | MM-0329R1 | — |
| طقم مقايسة الامتصاص المناعي المرتبط بالإنزيم (cTnT) | MM-0795R2 | — | |
| طقم التألق الكيميائي المعزز | Proteintech Group, Inc | PK10001 | — |
| جسم مضاد من الماعز ضد IgG الأرنب | شركة Aimee Technology Co., Ltd. | 111-545-003 | AB_2338046 |
| جسم مضاد ثانوي من الماعز مضاد لـ IgG الفأري مقترن بإنزيم HRP | شركة Beijing Cowin Biotech Co.,Ltd. | CW0102 | نظرًا لعدم توفر نص مصدر للترجمة، يرجى تزويدنا بالنص الذي ترغب في ترجمته من الإنجليزية إلى العربية وفقًا للمعايير العلمية والأكاديمية المحددة. |
| HiScript III RT SuperMix | Vazyme Biotech Co., Ltd. | R323-01 | — |
| برنامج ImageJ | المعاهد الوطنية للصحة | الإصدار 4.0 | SCR_003070 |
| نظام التصوير | Bio-Rad Laboratories, Inc | ChemiDoc MP | |
| جهاز تخدير الحيوانات الصغيرة متعدد القنوات | شركة RWD Life Science Co., Ltd | R510-22-10 | — |
| المجهر | شركة أوليمبوس للبصريات المحدودة (Olympus Optical Co., Ltd.) | DP72 | — |
| برنامج NeuroExplorer | شركة بكين بليكسون للتكنولوجيا المحدودة (Beijing Plexon Technology Co., Ltd.) | الإصدار 5.0 | SCR_001818 |
| برنامج Offline Sorter | شركة بكين بليكسون للتكنولوجيا المحدودة (Beijing Plexon Technology Co., Ltd.) | الإصدار 4.7.2 | SCR_000012 |
| Orbitrap Astral | Thermo Fisher Scientific | — | — |
| سلك توصيل الأطراف القياسي الثاني Powerlab النظام | شركة إيه دي إنسترومنتس إنترناشيونال للتجارة المحدودة (AD Instruments International Trading Co., Ltd.) | ML118 | — |
| عمود الحبس PepMap Neo | Thermo Fisher Scientific | — | — |
| مثبطات الفوسفاتاز | شركة شنغهاي بييونتيان للتكنولوجيا الحيوية المحدودة (Shanghai Biyuntian Biotechnology Co., Ltd.) | P1081 | — |
| برنامج R | — | الإصدار 4.5.2 | SCR_001905 |
| محلول RIPA لإحلال الخلايا | شركة Yeasen Biotechnology Co., Ltd. | 20115ES60 | — |
| RNAiso Plus | شركة TaKaRa Biotechnology Co., Ltd. | 9108 | — |
| نظام التصوير بالموجات فوق الصوتية الرقمي للحيوانات الصغيرة | شركة فيينو تكنولوجي المحدودة (Feiyino Technology Co., Ltd.) | مختبر VINNO6 | — |
| برمجيات إحصائية | برمجيات GraphPad | الإصدار 8.0 | SCR_002798 |
| الاستحواذ متعدد القنوات باستخدام OmniPlex النظام | شركة بكين بليكسون للتكنولوجيا المحدودة (Beijing Plexon Technology Co., Ltd.) | الإصدار 1.20.0 | — |
| Triton X-100 | شركة بكين سولاب للتكنولوجيا المحدودة (Beijing Solab Technology Co., Ltd.) | 22298142 | — |
| نظام الكروماتوغرافيا السائلة عالية الأداء فائقة الوضوح Vanquish Neo UHPLC | Thermo Fisher Scientific | — | — |
| µPAC عمود Neo عالي الإنتاجية | Thermo Fisher Scientific | — | — |
المراجع
- Valente V, et al. The global epidemiology of heart failure: a comprehensive and contemporary review. Eur J Heart Fail. 2026.
- Triposkiadis F, et al. The sympathetic nervous system in heart failure physiology, pathophysiology, and clinical implications. J Am Coll Cardiol. 2009;54(19):1747-62.
- Arshad MS, et al. Sympathetic nervous system in heart failure: targets for treatments. Curr Hypertens Rep. 2025;27(1):20.
- Fan H, et al. The hypotensive role of acupuncture in hypertension: clinical study and mechanistic study. Front Aging Neurosci. 2020;12:138.
- Zuo H, et al. Electroacupuncture alleviates acute myocardial ischemic injury in mice by regulating the β1 adrenergic receptor and post-receptor protein kinase A signaling pathway. Acupunct Med. 2024;42(6):342-55.
- Wu HS, et al. Neural mechanism of HT7 electroacupuncture in myocardial ischemia: critical role of the paraventricular nucleus oxytocin system. Front Neurosci. 2025;19:1678938.
- Kun W, et al. Electroacupuncture ameliorates cardiac dysfunction in myocardial ischemia model rats: a potential role of the hypothalamic-pituitary-adrenal axis. J Tradit Chin Med. 2023;43(5):944-54.
- Xu W, et al. Electroacupuncture ameliorates chronic heart failure: the role of CRH neurons in the paraventricular nucleus of the hypothalamus. Front Neurosci. 2026;20:1741523.
- Andresen MC, Kunze DL. Nucleus tractus solitarius--gateway to neural circulatory control. Annu Rev Physiol. 1994;56:93-116.
- Craft GE, et al. Recent advances in quantitative neuroproteomics. Methods. 2013;61(3):186-218.
- Charan J, Kantharia ND. How to calculate sample size in animal studies? J Pharmacol Pharmacother. 2013;4(4):303-6.
- Zhou J, et al. Electroacupuncture pretreatment mediates sympathetic nerves to alleviate myocardial ischemia-reperfusion injury via CRH neurons in the paraventricular nucleus of the hypothalamus. Chin Med. 2024;19(1):43.
- Litwin SE, et al. Serial echocardiographic assessment of left ventricular geometry and function after large myocardial infarction in the rat. Circulation. 1994;89(1):345-54.
- Shu Q, et al. Electroacupuncture alleviates myocardial ischemia-reperfusion injury by inhibiting hypothalamic paraventricular nucleus neurons projecting to the rostral ventrolateral medulla. Eur J Neurosci. 2024;60(5):4861-76.
- Wan F, et al. Electroacupuncture improves cerebral blood flow in vascular cognitive impairment mice by activating the locus coeruleus-prefrontal cortex circuit. Neuroscience. 2025;583:33-42.
- Xu R, et al. Electroacupuncture ameliorates incisional pain via suppressing IL-33 signaling-related macrophage infiltration and ROS overproduction in incised skin. Chin Med. 2026;21(1):26.
- Quiroga RQ, et al. Unsupervised spike detection and sorting with wavelets and superparamagnetic clustering. Neural Comput. 2004;16(8):1661-87.
- Goldwyn JH, et al. Gain control with A-type potassium current: IA as a switch between divisive and subtractive inhibition. PLoS Comput Biol. 2018;14(7):e1006292.
- Buzsáki G. Large-scale recording of neuronal ensembles. Nat Neurosci. 2004;7(5):446-51.
- Zhang J, Mifflin SW. Responses of aortic depressor nerve-evoked neurones in rat nucleus of the solitary tract to changes in blood pressure. J Physiol. 2000;529(Pt 2):431-43.
- Benarroch EE. The central autonomic network: functional organization, dysfunction, and perspective. Mayo Clin Proc. 1993;68(10):988-1001.
- Scheitz JF, et al. Bidirectional brain-heart interactions in health and disease. Nat Rev Neurol. 2026;22(4):209-25.
- Floras JS. Sympathetic nervous system activation in human heart failure: clinical implications of an updated model. J Am Coll Cardiol. 2009;54(5):375-85.
- Iannetta D, et al. Dissecting the exercise pressor reflex in heart failure: a multi-step failure. Auton Neurosci. 2025;259:103269.
- Sved AF, et al. Baroreflex dependent and independent roles of the caudal ventrolateral medulla in cardiovascular regulation. Brain Res Bull. 2000;51(2):129-33.
- Liu Y, et al. Neurophysiological basis of electroacupuncture stimulation in the treatment of cardiovascular-related diseases: vagal interoceptive loops. Brain Behav. 2024;14(10):e70076.
- Zhou W, Benharash P. Effects and mechanisms of acupuncture based on the principle of meridians. J Acupunct Meridian Stud. 2014;7(4):190-3.
- Fawcett JW, et al. The roles of perineuronal nets and the perinodal extracellular matrix in neuronal function. Nat Rev Neurosci. 2019;20(8):451-65.
- Moon S, Ito Y. Vasculature cells control neuroglial co-localization and synaptic connection in a central nervous system tissue mimic system. Hum Cell. 2023;36(6):1938-47.
- Ferrer-Ferrer M, Dityatev A. Shaping synapses by the neural extracellular matrix. Front Neuroanat. 2018;12:40.
- Rabinowitch I, et al. Understanding neural circuit function through synaptic engineering. Nat Rev Neurosci. 2024;25(2):131-9.
- McGeachie AB, et al. Stabilising influence: integrins in regulation of synaptic plasticity. Neurosci Res. 2011;70(1):24-9.
- Qiu L, et al. RNA modification: mechanisms and therapeutic targets. Mol Biomed. 2023;4(1):25.
- Clapier CR, et al. Mechanisms of action and regulation of ATP-dependent chromatin-remodelling complexes. Nat Rev Mol Cell Biol. 2017;18(7):407-22.
- Du W, et al. Mechanisms of chromatin-based epigenetic inheritance. Sci China Life Sci. 2022;65(11):2162-90.
- Rashid F, et al. Mechanomemory of nucleoplasm and RNA polymerase II after chromatin stretching by a microinjected magnetic nanoparticle force. Cell Rep. 2024;43(7):114462.
- Weintraub AS, et al. YY1 is a structural regulator of enhancer-promoter loops. Cell. 2017;171(7):1573-88.e28.
- Zurkirchen L, et al. Yin Yang 1 sustains biosynthetic demands during brain development in a stage-specific manner. Nat Commun. 2019;10(1):2192.
- Cunningham JT, et al. mTOR controls mitochondrial oxidative function through a YY1-PGC-1alpha transcriptional complex. Nature. 2007;450(7170):736-40.
- van Weperen VYH, Vaseghi M. The brain-heart axis: effects of cardiovascular disease on the CNS and opportunities for central neuromodulation. Nat Rev Neurosci. 2026;27(3):159-77.
- Lam JC, et al. YY1-controlled regulatory connectivity and transcription are influenced by the cell cycle. Nat Genet. 2024;56(9):1938-52.
- Montuoro S, et al. Neuroimmune cross-talk in heart failure. Cardiovasc Res. 2025;121(4):550-67.