أدت التحليلات المدمجة للنسخ المتعدد (transcriptomic) على مستوى الكتلة والخلية الواحدة إلى تحديد ستة مؤشرات حيوية تشخيصية مرتبطة بأيض الهيم للجُدرات. وقد دعّم التحقق التجريبي وجود خلل في تنظيم مستقبل الفيروسات القهقرية السنورية من المجموعة الفرعية C 1 (FLVCR1) في أرومات الليف الخاصة بالجُدرات، بينما حدد الالتحام الجزيئي مركب (+)-gallocatechin كمركب محتمل للتفاعل مع FLVCR1، مما يستوجب إجراء المزيد من الاستقصاءات الوظيفية.
مقالة بحثية
تحديد المؤشرات الحيوية المرتبطة بتمثيل الهيم في الجدرات باستخدام التحليل الترانسكريبتومي والخلايا الليفية البشرية المستنبتة
في هذه المقالة
ملخص
الملخص
تُعد الجدرة (Keloid) اضطراباً تكاثرياً ليفياً يتميز بمعدل تكرار مرتفع وإمراضية غير واضحة، وتفتقر إلى أهداف علاجية فعالة. وتشير الأدلة الحديثة إلى أن إعادة البرمجة الأيضية، لا سيما في أيض الهيم، قد تكون دافعاً للتليف. تبحث هذه الدراسة في دور أيض الهيم، مع التركيز على مستقبل الفيروس اللوكيميا السنوري من المجموعة الفرعية C 1 (FLVCR1)، في إمراضية الجدرة وتستكشف إمكاناتها التشخيصية والعلاجية. قمنا بتحليل مجموعات بيانات تسلسل الحمض النووي الريبوزي الشامل (bulk RNA-seq) وبيانات تسلسل الحمض النووي الريبوزي أحادي الخلية (scRNA-seq). وقد حددت نماذج التعبير التفاضلي، وأقل تقلص مطلق واختيار (LASSO)، والغابة العشوائية (RF) علامات حيوية تشخيصية مرتبطة بأيض الهيم. كما تم إجراء تحليل للتسلل المناعي، ورسم خرائط أحادية الخلية، وبناء شبكة من الحمض النووي الريبوزي الميكروي (miRNA)، والرسو الجزيئي مع مركبات الطب الصيني التقليدي. تم تحديد ست علامات حيوية مرتبطة بأيض الهيم، مما شكل مخططاً تشخيصياً (nomogram) عالي الدقة. وقد ارتبط FLVCR1، الذي يتوفر بكثرة في الخلايا البطانية والخلايا الميلانينية، ارتباطاً سلبياً مع الخلايا التائية المساعدة الجريبية، مما يشير إلى وجود تواصل مناعي أيضي. وكشف تحليل شبكة تنظيم miRNA عن خمسة miRNAs تستهدف جميع العلامات الحيوية الست بشكل مشترك. كما حدد الرسو الجزيئي مركب (+)-gallocatechin كربيطة عالية الألفة لـ FLVCR1. تشير هذه النتائج إلى وجود ارتباط بين أيض الهيم المرتبط بـ FLVCR1 والتغيرات المناعية في إمراضية الجدرة. وأظهرت لوحة العلامات الحيوية إمكانات تشخيصية استكشافية، وتم تحديد (+)-gallocatechin كمركب مرشح للتفاعل مع FLVCR1 يتطلب مزيداً من التحقق. تعيد هذه الدراسة صياغة الجدرة ضمن الطيف الأيضي الليفي، وتقترح التدخل الأيضي المناعي كإستراتيجية علاجية جديدة.
المقدمة
تُعد الجدرة (Keloid) اضطراباً تليفياً تكاثرياً يتميز بترسب مفرط للمادة الخلالية خارج الخلوية يمتد إلى ما وراء حدود إصابة الجلد الأصلية، وهي تصيب 4–16% من سكان العالم، مع انتشار أعلى بشكل ملحوظ بين الأفراد من أصول أفريقية وآسيوية وهسبانية1,2. وعلى الرغم من طبيعتها الحميدة نسيجياً، إلا أن الجدرة تفرض أعباءً جسدية ونفسية واجتماعية جسيمة من خلال الحكة المستمرة، والألم، والتقلص الوظيفي، والتشوه التجميلي. وتظل الوسائل العلاجية الحالية، بما في ذلك الكورتيكوستيرويدات داخل الآفة، والاستئصال الجراحي، والعلاج الإشعاعي، والعلاج بالليزر، غير كافية، حيث تتجاوز معدلات الانتكاس 50% بعد العلاج الأحادي3,4,5. ويؤكد هذا المأزق العلاجي وجود فجوة أساسية في فهمنا للإمراض الخاص بالجدرة، وخاصة المحفزات الأولية التي تطلق وتحافظ على الشلال التليفي بما يتجاوز إشارات تحفيز التليف التقليدية.
ركزت الأبحاث المعاصرة بشكل أساسي على المسارات التقليدية مثل إشارات TGF-β/Smad والتنشيط غير الطبيعي للخلايا الليفية6,7,8. وبينما تم توثيق ارتشاح الخلايا المناعية في أنسجة الجدرة (الكلوييد)—لا سيما البلاعم المستقطبة من النوع M2، والخلايا التائية المنظمة، والخلايا الشجرية المختلة9,10—إلا أن هذه الدراسات تعاملت إلى حد كبير مع التغيرات المناعية كعواقب ثانوية لخلل وظائف الخلايا الليفية بدلاً من كونها عوامل تنظيمية أولية. ومن الناحية النقدية، لا تزال البرامج الأيضية التي قد تشكل بنشاط هذا التفاعل المناعي الليفي غير مستكشفة تماماً في إمراضية الجدرة11,12,13. وتعتبر هذه الفجوة المعرفية لافتة للنظر، بالنظر إلى النماذج الناشئة في الاضطرابات التليفية التي يعمل فيها إعادة التوجيه الأيضي كمنظم رئيسي لإعادة تشكيل الأنسجة.
لقد برزت إعادة البرمجة الأيضية مؤخراً كعقدة مركزية في عملية التليف عبر أنظمة أعضاء متعددة. ففي حالات التليف الرئوي والكبدي، يؤدي اختلال التوازن في استتباب الهيم —من خلال التعبير المتغير للنواقل، أو الكناسات، أو الإنزيمات الاصطناعية الحيوية— إلى تحفيز الإجهاد التأكسدي، والموت الخلوي الحديدي (ferroptosis)، والالتهاب العقيم الذي يعزز بشكل مباشر ترسب الكولاجين14. ويعمل تراكم الهيم على تنشيط الجسيم الالتهابي NLRP3 لدفع تنشيط الخلايا الليفية، بينما يؤدي نقص مستقبل فيروس لوكيميا القطط من المجموعة الفرعية C 1 (FLVCR1) إلى تفاقم تليف الأنسجة بسبب سمية الهيم غير المعالجة. وتضع هذه النتائج استقلاب الهيم ليس مجرد عملية صيانة خلوية روتينية، بل كمركز إشارات ديناميكي قادر على بدء شلالات تليفية —وهو نموذج لم يتم اختباره بعد في الاضطرابات الليفية التكاثرية الجلدية.
تتعزز احتمالية التعديل المناعي بوساطة الهيم من خلال الأدلة الميكانيكية المستمدة من نماذج السرطان والالتهابات المزمنة. يعمل الهيم كجزيء إشارة يعدل بشكل مباشر مصير الخلايا المناعية: فهو يعزز استقطاب الخلايا البلعمية من M1 إلى M2 عبر مسار إشارات TLR4/NF-κB15، ويؤثر على تمايز الخلايا التائية من خلال الكبح النسخي بوساطة Bach216، وينظم بشكل حاسم نضج الخلايا التغصنية عبر تصدير الهيم المعتمد على FLVCR117,18. ومن الجدير بالذكر أن FLVCR1، وهو مصدّر للهيم في الغشاء البلازمي وضروري للتوازن الخلوي للهيم، قد ارتبط مؤخراً بتطور الخلايا المناعية والخلل الوظيفي البطاني19. تضع هذه الأدلة المتضافرة FLVCR1 كحلقة وصل جزيئية محتملة تربط بين خلل تنظيم استقلاب الهيم وإعادة التشكيل المناعي المرضي، وهي فرضية ذات تداعيات عميقة على نشوء الجدرة (الكلوييد) نظراً لبيئتها المجهرية الغنية بالمناعة.
على الرغم من التقدم الكبير في فهم التداخل بين الهيم والجهاز المناعي في سياقات مرضية أخرى، إلا أنه لا يزال من غير المستكشف تماماً ما إذا كان خلل أيض الهيم يعمل كمحرك علوي يبدأ أو يضخم المشهد المناعي المرضي في الجدرات (keloids). وتستدعي هذه الفجوة المعرفية الحرجة تحقيقاً عاجلاً لعدة أسباب مترابطة: تشترك الجدرات في سمات مرضية مميزة — بما في ذلك الالتهاب المستمر والإجهاد التأكسدي — مع الاضطرابات التليفية المدفوعة بالأيض مثل التليف الرئوي والكبدي، مما يشير إلى احتمالية وجود قواسم مشتركة في الآليات التنظيمية الأساسية. وقد تم التحقق ميكانيكياً من أن آلية تصدير الهيم المتمحورة حول FLVCR1 في الأنسجة غير الجلدية تتحكم مباشرة في وظائف مناعية رئيسية مثل استقطاب الخلايا البلعمية ونضج الخلايا التغصنية، مما يوفر أساساً نظرياً قوياً لإسقاط ذلك على المناعة المرضية للجدرات20. والأهم من ذلك، أن استهداف هذا المحور الأيضي المناعي يوفر فرصة لإحداث نقلة نوعية تتجاوز العلاجات العرضية الحالية التي تكتفي بتثبيط التأثيرات التليفية النهائية، مما قد يسمح بتدخل علوي عند الأصل الأيضي لتطور المرض21.
بناءً على هذا المنطق، افترضنا أن الخلل في تنظيم استقلاب الهيم المتمحور حول FLVCR1 يعيد تشكيل البيئة المجهرية المناعية بنشاط لدفع إمراضية الجدرة. وللتحقق من هذه الفرضية بشكل منهجي، دمجنا تحليلات الترانسكريبتوم الشاملة والمنفردة في نهج متعدد المستويات: حيث قمنا أولاً بتحديد والتحقق من المؤشرات الحيوية التشخيصية المرتبطة باستقلاب الهيم في أنسجة الجدرة باستخدام خوارزميات التعلم الآلي والتحقق من مجموعة مستقلة؛ ثم قمنا بتحديد أنماط التعبير المكاني لهذه المؤشرات الحيوية عبر مقصورات خلوية متميزة — بما في ذلك الخلايا البطانية، والخلايا الليفية، والخلايا الميلانينية، والمجموعات الفرعية المناعية — من خلال رسم الخرائط بدقة الخلية الواحدة؛ وبعد ذلك، حددنا ارتباطاتها الكمية مع مجموعات خلوية مناعية محددة لإنشاء روابط مناعية-استقلابية وظيفية؛ وأخيراً، قمنا ببناء شبكة تنظيمية من الـ microRNA (miRNA) متمحورة حول FLVCR1 وأجرينا نمذجة الالتحام الجزيئي مع مركبات الطب الصيني التقليدي لتحديد نقاط التدخل الدوائية الممكنة. لا يكشف هذا الاستقصاء الشامل عن محور استقلاب الهيم-المناعة الذي لم يكن معروفاً سابقاً في إمراضية الجدرة فحسب، بل يقدم أيضاً لوحة مؤشرات حيوية ذات صلة ترجمية تمتلك إمكانيات تشخيصية وعلاجية مزدوجة لهذا الاضطراب الليفي التكاثري المستعصي.
البروتوكول
لم تكن الموافقة الأخلاقية والموافقة المستنيرة قابلة للتطبيق في هذه الدراسة لأن جميع البيانات تم الحصول عليها من قواعد بيانات متاحة للعموم، بما في ذلك Gene Expression Omnibus (GEO)، ولم يشارك فيها بشكل مباشر أي مشاركين بشريين أو حيوانات تجارب يمكن تحديد هويتهم.
جمع البيانات ومعالجتها مسبقاً
تم الحصول على الجينات المرتبطة باستقلاب الهيم من قاعدة بيانات التواقيع الجزيئية (MSigDB؛ انظر جدول المواد والجدول التكميلي S1)، بما في ذلك مجموعات الجينات من REACTOME_Heme_Biosynthesis وREACTOME_Heme_Degradation وWikipathway_Heme_Biosynthesis وREACTOME_Scavenging_Heme_from_Plasma وHALLMARK_Heme_Metabolism. جميع مجموعات البيانات التي تم تحليلها في هذه الدراسة تم الحصول عليها من مصادر متاحة علنًا. تم استرداد مجموعتي بيانات للتعبير الجيني الشامل (bulk gene-expression) باستخدام مصفوفات دقيقة (microarray) من قاعدة بيانات Gene Expression Omnibus (GEO): GSE44270، والتي تضم 18 عينة جدرة (keloid) و14 عينة من الجلد الطبيعي، وGSE7890، والتي تضم 10 عينات جدرة و9 عينات من الجلد الطبيعي. تم إنتاج GSE44270 وGSE7890 على منصات GPL6244 وGPL570 على التوالي. تم تنزيل ملفات مصفوفة السلسلة (series matrix files) ومعلومات العينات المقابلة واستيرادها إلى بيئة R. ونظرًا لأن قيم التعبير في ملفات مصفوفة السلسلة كانت قد خضعت بالفعل للمعالجة المسبقة والتقييس من قبل مقدمي البيانات الأصليين، لم يتم إجراء أي تحويل log2 إضافي أو تقييس بين العينات. تمت معالجة مجموعتي البيانات بشكل مستقل ولم يتم دمجهما لأنهما أنتجا على منصات مصفوفات دقيقة مختلفة. تمت معالجة مجموعات البيانات مسبقًا كما هو موضح أدناه (انظر جدول المواد). تم تعيين مسابير الجينات (gene probes) إلى رموز الجينات المقابلة لها، واستُبعدت المسابير التي تفتقر إلى التعليقات التوضيحية الجينية أو التي تطابقت مع جينات متعددة. وبالنسبة للجينات التي تحتوي على مجموعات مسابير متعددة، تم تعيين قيمة التعبير بناءً على أعلى مستوى تعبير تم رصده. بالإضافة إلى ذلك، تم تنزيل بيانات تسلسل الحمض النووي الريبوزي أحادي الخلية (scRNA-seq) من GSE163973، والتي تحتوي على ثلاث عينات جدرة، وتمت معالجتها وفقًا لمعايير مراقبة الجودة المحددة في الدراسة الأصلية.
فحص والتحقق من صحة المؤشرات التشخيصية المرتبطة باستقلاب الهيم في الجُدرة
لتحديد الجينات المرتبطة باستقلاب الهيم والتي يتم التعبير عنها بشكل تفاضلي في الجدرة، تم تطبيق اختبار ويلكوكسون لمجموع الرتب (Wilcoxon rank-sum test) على مجموعة البيانات GSE44270 باستخدام دالة wilcox.test في لغة R، مع تحديد عتبة دلالة إحصائية P < 0.05. ولتحديد علامات تشخيصية محتملة للجدرة، تم استخدام نموذجين من نماذج التعلم الآلي: الغابة العشوائية (RF) والانحدار اللوجستي باستخدام عامل تقلص واختيار مطلق أدنى (LASSO). أُجري تحليل الغابة العشوائية باستخدام بذرة عشوائية بقيمة 1 لضمان إمكانية تكرار النتائج (انظر جدول المواد). تم بناء النموذج باستخدام 500 شجرة (ntree = 500)، وتم تقييم أهمية الجينات بناءً على متوسط الانخفاض في عدم نقاء العقدة (IncNodePurity). تم اختيار الجينات التي تزيد قيم أهميتها عن 0.3 كعلامات حيوية مرشحة مشتقة من نموذج الغابة العشوائية. كما أُجري الانحدار اللوجستي LASSO بقيمة α = 1، وتم تقييم 50 قيمة لـ lambda أثناء تدريب النموذج (انظر جدول المواد). تم تحديد معامل الجزاء الأمثل باستخدام التحقق المتقاطع خماسي الطيات (5-fold cross-validation) عبر دالة cv.glmnet، مع استجابة ثنائية الحد. تم الاحتفاظ بالجينات ذات معاملات الانحدار غير الصفرية كمرشحات مختارة بواسطة LASSO. وأخيراً، اعتُبر تقاطع الجينات التي حددها كل من نموذج الغابة العشوائية وانحدار LASSO بمثابة البصمة الجينية التشخيصية النهائية. تم تقييم البصمة الجينية التشخيصية النهائية باستخدام نموذج يعتمد على المخطط البياني (nomogram). أُجريت جميع عمليات اختيار الميزات وتقدير معلمات النموذج حصرياً في مجموعة الاكتشاف (GSE44270)، ثم تم تقييم البصمة المكونة من ستة جينات في مجموعة التحقق المستقلة (GSE7890). تم تقييم الأداء التشخيصي للمخطط البياني عن طريق حساب المساحة تحت منحنى خصائص تشغيل المستقبل (AUC). ولفحص استقرار النموذج، شمل التحليل التحقق المتقاطع خماسي الطيات و 1,000 تكرار لإعادة أخذ العينات بطريقة bootstrap، والتي اشتق منها AUC مصحح من التفاؤل. بعد ذلك، استُخدم تحليل منحنى القرار (DCA) لتقدير الفائدة الصافية المحتملة للمخطط البياني؛ ومع ذلك، تم تفسير هذه النتيجة بحذر نظراً لصغر حجم العينة.
تسلل الخلايا المناعية وتحليل الارتباط
تم تقييم إثراء الخلايا المناعية عن طريق تحليل إثراء مجموعة الجينات للعينة الواحدة (ssGSEA) (انظر الـ جدول الموادتم الحصول على مصفوفة بصمة الخلايا المناعية من دراسة منشورة سابقاً أجراها Charoentong وآخرون.22واحتوت على 782 جيناً واصماً تمثل 28 مجموعة من الخلايا المناعية التكيفية والفطرية. أُجري التحليل باستخدام نواة غاوس (Gaussian kernel) على قيم التعبير الجيني المستمرة والمطبعة المستمدة من المصفوفات الدقيقة (microarray). وكان الحد الأدنى المطلوب لحجم مجموعة الجينات هو 10 جينات بعد مطابقة الجينات الواصمة مع مصفوفة التعبير، ثم جرى تطبيع درجات تحليل إثراء مجموعة الجينات المفردة (ssGSEA) الناتجة. بينما تم الإبقاء على جميع الإعدادات الأخرى عند قيمها الافتراضية. وعقب ذلك، حُسبت معاملات ارتباط بيرسون لتقييم العلاقات بين درجات إثراء الخلايا المناعية والتعبير الجيني التشخيصي. وتم تمثيل مصفوفة الارتباط الناتجة بصرياً في شكل مخطط ارتباط، كما عُرضت ارتباطات مختارة بشكل إضافي في شكل مخططات المصاصة (lollipop plots) (انظر الـ جدول المواد).
معالجة وتحليل بيانات تسلسل الحمض النووي الريبوزي أحادي الخلية
تم الحصول على بيانات تسلسل الحمض النووي الريبوزي أحادي الخلية (Single-cell RNA sequencing) من قاعدة البيانات GSE163973، وقد شمل التحليل الحالي عينات الجدرة الثلاث فقط: KF1 وKF2 وKF3. تم استيراد بيانات التعبير الجيني ومعالجتها كما هو موضح أدناه (انظر الـ جدول الموادتم استبعاد الخلايا التي يقل إجمالي عدد معرفاتها الجزيئية الفريدة (UMI) عن 200 أو يزيد عن 6,000، كما تم إزالة الثنائيات المتوقعة. وتم تطبيع أعداد التعبير الجيني لكل خلية بالنسبة للتعبير الخلوي الإجمالي، ثم ضُربت في عامل قياس قدره 10,000، وأُجري لها تحويل لوغاريتمي. كما تم استبعاد التباين المرتبط بالدفعة (Batch-associated variation) أثناء قياس البيانات، واستُخدمت البواقي المقيسة الناتجة في التحليلات اللاحقة. واختيرت أعلى 2,000 من الجينات عالية التباين بناءً على متوسط تعبيرها وتشتتها، وأُجري عليها تحليل المكونات الرئيسية. واستُخدمت المكونات الرئيسية الخمسة عشر الأولى لبناء مخطط الجار الأقرب-k بناءً على المسافات الإقليدية، والذي حُوِّل لاحقاً إلى مخطط الجار الأقرب المشترك. وجُمعت الخلايا في عناقيد باستخدام خوارزمية Louvain بدقة 0.8، وأُجري تقريب وتوقع المتشعب الموحد (UMAP) باستخدام المكونات الرئيسية الخمسة عشر ذاتها. كما صُنفت أنواع الخلايا وفقاً لتعريفات أنواع الخلايا الواردة في الدراسة الأصلية، وسُجلت التصنيفات الناتجة في حقل البيانات الوصفية. وعُرضت تصنيفات أنواع الخلايا وتعيينات العناقيد بيانياً على إحداثيات تقريب وتوقع المتشعب الموحد، كما عُرض التعبير الجيني التشخيصي عبر مجموعات الخلايا المصنفة.
بناء الشبكة التنظيمية لـ miRNA–mRNA
تم بناء شبكة تنظيم miRNA–mRNA كما هو موضح أدناه (راجع جدول المواد). تم اختيار Homo sapiens ككائن حي، وقُدمت معرفات الجينات في شكل رموز الجينات الرسمية (Official Gene Symbols). أُرسلت الجينات المرشحة إلى وحدة تفاعلات الجينات-miRNA (Gene–miRNA Interactions module)، واختيرت قاعدة بيانات TarBase v9.0 كقاعدة بيانات للتفاعلات. تحتوي TarBase على تفاعلات تنظيمية بين miRNA والجينات تم التحقق منها تجريبيًا. تم الإبقاء فقط على تفاعلات miRNA–mRNA المدعومة تجريبيًا والتي تشمل الجينات المرشحة المدخلة لبناء الشبكة، بينما استُبعدت التفاعلات المتوقعة التي تفتقر إلى دليل تجريبي. لم يتم فرض أي حد إضافي لدرجة الثقة.
الفحص الافتراضي القائم على البنية وتحليل الالتحام الجزيئي
أُجري الفحص الافتراضي لتحديد أولويات الربيطات المرشحة من مكتبة المركبات ضد بروتين FLVCR1 البشري (البروتين 1 المرتبط بمستقبل فيروس لوكيميا القطط من المجموعة الفرعية C؛ انظر جدول المواد) باستخدام سير عمل الفحص الافتراضي القائم على البنية (SBVS). تم استرداد البنية ثلاثية الأبعاد لبروتين FLVCR1 البشري من بنك بيانات البروتينات (PDB ID: 8UBZ). تمثل هذه البنية بروتين FLVCR1 البشري المرتبط بالكولين، والتي تم تحديدها بواسطة المجهر الإلكتروني المبرد للجزيئات المنفردة بدقة إجمالية بلغت 3.02 Å (رقم الوصول في EMDB: EMD-42110). تم اختيار البنية المحددة تجريبياً لأنها تحتوي على الهيئة المرتبطة بمادة التفاعل لبروتين FLVCR1، وبالتالي توفر معلومات بنيوية لتحديد تجويف ربط الربيطة ذي الصلة الفسيولوجية. وأثناء تحضير المستقبل، تم الإبقاء على جزيئات الكولين (CHT) وهيميسكسينات الكوليسترول (Y01) التي تم تحليلها معاً للحفاظ على البيئة البنيوية المحيطة بمنطقة دخول مادة التفاعل وربط الربيطة. تم تحديد مساحة بحث الإرساء حول تجويف ربط مادة التفاعل/الربيطة لبروتين FLVCR1 بحيث تشمل منطقة ربط الكولين التي تم تحليلها معاً. تم تمركز صندوق الشبكة عند x = 160.587 Å و y = 160.613 Å و z = 160.484 Å. وقد حُددت أبعاد صندوق الإرساء بـ [X × Y × Z Å] لضمان التغطية الكافية لتجويف ربط مادة التفاعل والبقايا المحيطة به. بعد ذلك، أُجري إرساء للمركبات المرشحة في منطقة الربط المحددة مسبقاً هذه. صُنفت وضعيات الإرساء وفقاً لألفات الربط المتوقعة، حيث تشير درجات الإرساء الأكثر سالبية إلى تفاعلات متوقعة أكثر ملاءمة بين الربيطة وبروتين FLVCR1. تم اختيار المركبات الأعلى تصنيفاً لإجراء تحليلات لاحقة لوضعية الربط وتفاعلات البروتين والربيطة.
محاكاة الديناميكا الجزيئية وحساب طاقة الارتباط الحرة بطريقة MM/GBSA
استُخدمت محاكاة الديناميكا الجزيئية (MD) لمزيد من الفحص لمعقد البروتين-الربيطة المتوقع (انظر جدول المواد). تم إعداد توبولوجيا الربيطة عن طريق تعيين معاملات حقل القوة العام لـ Amber (GAFF) ودمج شحنات الجهد الكهروساتيكي المقيد (RESP). ثم وُصف المعقد باستخدام حقل القوة Amber99SB-ILDN، ووُضع في جهد بين جزيئي قابل للنقل مع نموذج مياه ذي 3 نقاط، وتمت معادلة الشحنة باستخدام ثلاثة أيونات Na⁺. بعد تقليل الطاقة بطريقة الانحدار الأكثر انحداراً، تم موازنة النظام لمدة 100 ps تحت مجموعة ذات عدد جسيمات وحجم ودرجة حرارة ثابتين، ولمدة 100 ps أخرى تحت مجموعة ذات عدد جسيمات وضغط ودرجة حرارة ثابتين، مع 100,000 خطوة في كل مرحلة. بعد ذلك، أُجري تشغيل إنتاجي لمدة 100 ns عند 300 K وضغط 1 bar باستخدام خطوة زمنية قدرها 2 fs. وحُلِّل المسار الناتج لحساب جذر متوسط مربع الانحراف (RMSD)، وجذر متوسط مربع التقلب (RMSF)، ونصف قطر الدوران (Rg)، ومساحة السطح المتاحة للمذيب (SASA)، واستمرارية الروابط الهيدروجينية، وطاقة الارتباط الحرة باستخدام الميكانيكا الجزيئية/مساحة سطح بور المعممة (MM/GBSA).
زراعة الخلايا
تم استزراع خط خلايا NHDF (الأرومات الليفية الجلدية البشرية الطبيعية) وخط خلايا PKF (الأرومات الليفية الأولية للجدرة) في وسط نمو الأرومات الليفية المكمل بـ 2% من مصل العجل الجنيني، وعامل نمو الأرومات الليفية الأساسي البشري المؤتلف (1 ng/mL)، والأنسولين (5 µg/mL). وقد تم الحفاظ على كلا الخطين الخلويين في حاضنة رطبة عند 37 °C مع 5% CO₂، وتم تمريرهما عند وصولهما إلى درجة تلاقي تتراوح بين 80–90%.
تحليل لطخة ويسترن
تم عزل البروتين الكلي من خلايا NHDF و PKF باستخدام محلول تحلل يتكون من مقايسة الترسيب المناعي الإشعاعي، وفينيل ميثيل سلفونيل فلورايد، ومزيج من مثبطات البروتياز، ومثبطات الفوسفاتاز. تم تحديد تركيز البروتين باستخدام مقايسة حمض البيسينكونينيك، وبعد ذلك تم فصل كميات متساوية من البروتين عن طريق الفصل الكهربائي للهلام بـ sodium dodecyl sulfate–polyacrylamide gel electrophoresis ونقلها إلى غشاء polyvinylidene fluoride. تم حجب الغشاء لمدة 90 دقيقة في درجة حرارة الغرفة باستخدام 5% من الحليب الجاف الخالي من الدسم المحضر في Tween/Tris-buffered saline، ثم تم تحضينه طوال الليل عند 4 °C مع أجسام مضادة أولية ضد FLVCR1 (أرنب متعدد النسائل، 1:1,000) و GAPDH (فأر أحادي النسائل، 1:20,000). وفي اليوم التالي، أُجري التحضين مع الجسم المضاد الثانوي لمدة 90 دقيقة في درجة حرارة الغرفة. تم قياس كثافة النطاقات باستخدام برنامج ImageJ، وعُيرت مستويات البروتين النسبية وفقاً للضابط الداخلي GAPDH. استُخدم ما لا يقل عن ثلاث مكررات بيولوجية مستقلة لكل مقايسة لطخة ويسترن (western blot).
تحليل تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي مع النسخ العكسي والفلورة (qRT-PCR)
تَمَّ تحضير الـ RNA الكلي من خلايا NHDF وPKF باستخدام الطقم المشار إليه. بعد ذلك، تَمَّ توليد الـ cDNA باستخدام مزيج تخليق الـ cDNA لـ qPCR (مع dsDNase) المشار إليه. أُجري تفاعل qRT-PCR على نظام PCR في الوقت الحقيقي، وقِيست تعبيرات FLVCR1 باستخدام SYBR Green Fast Mix المشار إليه. استُخدم الـ mRNA الخاص بـ GAPDH كمرجع داخلي لعملية التسوية. نُفذ كل تفاعل qRT-PCR في ثلاث مكررات تقنية، وحُسبت مستويات الـ mRNA النسبية بطريقة 2−ΔΔCt. أُجريت كل تجربة بشكل مستقل ثلاث مرات على الأقل، وتتوفر تسلسلات البادئات في الجدول التكميلي S2.
التحليل الإحصائي
تم اختبار الفروق بين المجموعات باستخدام اختبار ويلكوكسون لمجموع الرتب (Wilcoxon rank-sum test)، وسُجلت القيم كمتوسط ± الانحراف المعياري (SD). كما تم فحص الارتباطات بين المتغيرات المستمرة باستخدام معامل ارتباط بيرسون. واعتُبرت النتائج التي كانت فيها قيمة P < 0.05 ذات دلالة إحصائية. وأشير إلى مستويات الدلالة كما يلي: ns، P > 0.05؛ و *، P < 0.05؛ و **، P < 0.01؛ و ***، P < 0.001؛ و ****، P < 0.0001.
النتائج
فحص المؤشرات الحيوية التشخيصية المرشحة للجدرة باستخدام خوارزمية التعلم الآلي
شملت هذه الدراسة إجمالي 283 جينًا متعلقًا باستقلاب الهيم. وقد حدد تحليل التعبير التفاضلي لمجموعة بيانات GSE44270، من خلال مقارنة أنسجة الجدرة (keloid) وأنسجة الجلد الطبيعية، 25 جينًا ذات تعبير تفاضلي ملحوظ (الشكل 1A و الجدول التكميلي S3). ولمزيد من الفرز للمؤشرات الحيوية المرتبطة بالمرض، حدد انحدار LASSO تسعة جينات مرشحة (الشكل 1B،C و الجدول التكميلي S3)، بينما اختارت خوارزمية الغابة العشوائية (RF) أحد عشر جينًا ذات أهمية تنبؤية عالية (الشكل 1D و الجدول التكميلي S3). وتم تمثيل التداخل بين نتائج LASSO و RF باستخدام مخطط فين، مما أسفر عن ستة مؤشرات حيوية أساسية، وهي: FLVCR1 و TMCC2 و EIF2AK1 و XK و HPX و KEL (الشكل 1E و الجدول التكميلي S3). وأظهر تحليل منحنى خصائص التشغيل للمستقبل (ROC) في مجموعة GSE44270 أداءً تشخيصيًا جيدًا لجميع المؤشرات الحيوية الستة، حيث بلغت قيم AUC: 0.8016 لـ FLVCR1، و 0.7063 لـ TMCC2، و 0.7817 لـ EIF2AK1، و 0.7460 لـ XK، و 0.7500 لـ HPX، و 0.7857 لـ KEL (الشكل 1F). وبناءً على هذه المؤشرات الحيوية الستة، تم لاحقًا إنشاء مخطط تشخيصي (nomogram) للجدرة باستخدام حزمة rms في لغة R (الشكل 1G).
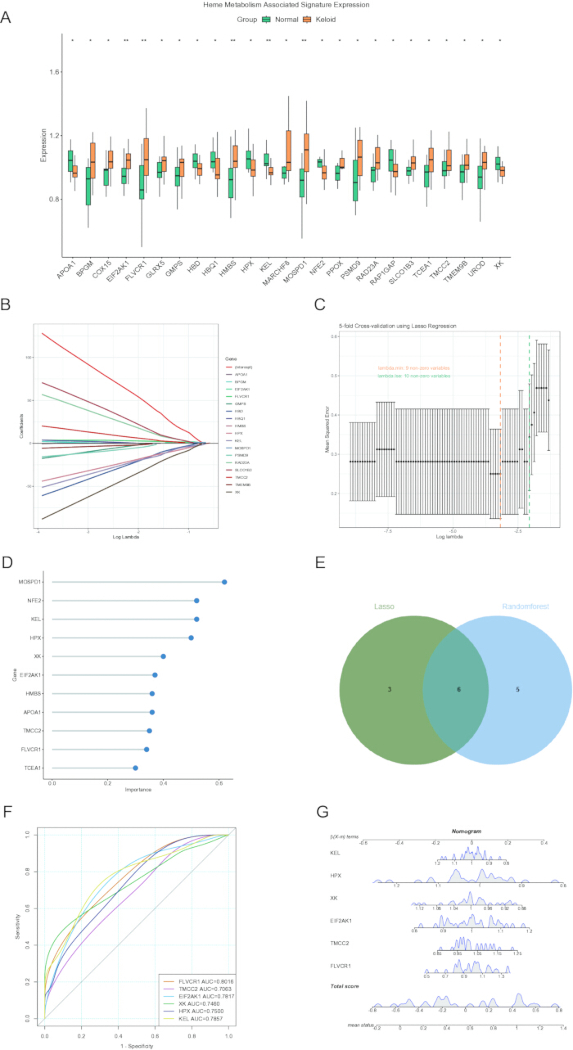
الشكل 1: تحديد الجينات المرشحة ذات الصلة باستقلاب الهيم المرتبطة بالجدرة باستخدام خوارزميات التعلم الآلي. (A) مخطط صندوقي يوضح التعبير التفاضلي للجينات المرتبطة باستقلاب الهيم بين أنسجة الجدرة والأنسجة الطبيعية. (B,C) تحليل انحدار LASSO اللوجستي لفحص المؤشرات التشخيصية المرشحة. (D) المؤشرات الحيوية المرشحة التي تم اختيارها بواسطة خوارزمية RF. (E) مخطط فين يوضح الجينات المتداخلة التي حددتها خوارزميتا التعلم الآلي. (F) تحليل منحنى ROC لتقييم الأداء التشخيصي للمؤشرات الحيوية المرشحة. (G) مخطط نوموجرام للتنبؤ بالجدرة بناءً على بصمة مكونة من ستة جينات. الاختصارات: LASSO، عامل تقليص واختيار أصغر مطلق؛ RF، الغابة العشوائية؛ ROC، خصائص تشغيل المستقبل. الدلالة الإحصائية: ns، P > 0.05؛ *، P < 0.05؛ **، P < 0.01؛ ***، P < 0.001؛ و ****، P < 0.0001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تم تقييم الأداء التنبؤي للمخطط التشخيصي (nomogram) في كل من مجموعة التدريب (GSE44270) ومجموعة التحقق (GSE7890). وقد أظهر النموذج دقة تشخيصية ممتازة، حيث حقق قيم AUC بلغت 0.984 (95% CI: 0.950–1.000) و0.922 (95% CI: 0.806–1.000) على التوالي (الشكل 2A,D). ولمزيد من التقييم لمتانة البصمة التشخيصية المكونة من ستة جينات واحتمالية حدوث فرط التخصيص (overfitting)، أُجريت تحليلات تحقق داخلية إضافية في مجموعة الاكتشاف (GSE44270). وأظهر التحقق المتقاطع خماسي الطيات (Fivefold cross-validation) أداءً تمييزياً متسقاً عبر المجموعات الفرعية، بمتوسط AUC بلغ 0.925، مما يشير إلى أن النموذج حافظ على أداء تصنيف مستقر رغم الاختلافات في عينات التدريب. علاوة على ذلك، أسفر التحقق بطريقة بوتستراب (bootstrap validation) مع 1,000 تكرار لإعادة أخذ العينات عن متوسط AUC بلغ 0.930 (95% CI: 0.794–1.000). وبعد التعديل لمعالجة التفاؤل المحتمل الناتج عن صغر حجم العينة، ظلت قيمة AUC المصححة من التفاؤل 0.930، مما يشير إلى أن الأداء التشخيصي للبصمة المكونة من ستة جينات كان مستقراً نسبياً بعد التحقق الداخلي. بالإضافة إلى ذلك، أشار تحليل منحنى القرار (DCA) إلى أن المخطط أظهر فائدة صافية محتملة أعلى من استراتيجيات التشخيص البديلة عبر مجموعة من احتمالات العتبة، على الرغم من وجوب تفسير هذه النتائج بحذر نظراً لصغر حجم العينة (الشكل 2B,E). كما أظهرت عينات الجدرة (keloid) درجات مخاطر أعلى بكثير من عناصر التحكم السليمة في كل من مجموعتي التدريب والتحقق (الشكل 2C,F)، مما يثبت بشكل أكبر استقرار وموثوقية النموذج التشخيصي.
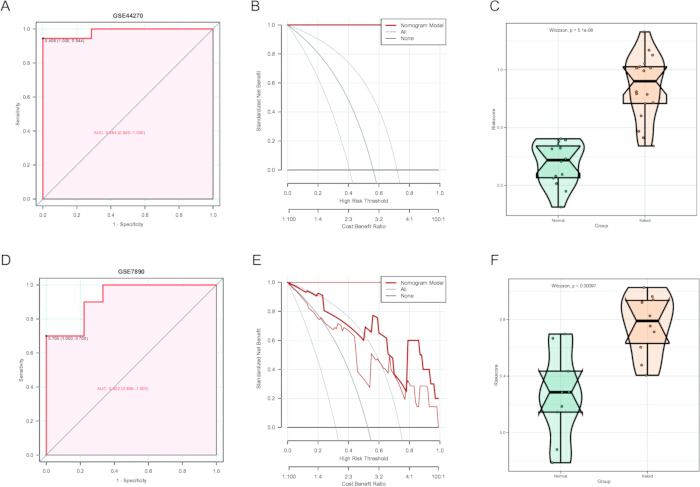
الشكل 2: التحقق من صحة المخطط البياني (nomogram) للتنبؤ بالجدرة. (A) منحنى ROC لتقييم الأداء التنبؤي للمخطط البياني في مجموعة بيانات GSE44270. (B) تحليل منحنى القرار (DCA) لتقييم الفائدة السريرية للمخطط البياني في GSE44270. (C) توزيع درجات المخاطر بمقارنة عينات الجدرة والعينات السليمة في GSE44270. (D) منحنى ROC لتقييم الأداء التنبؤي للمخطط البياني في مجموعة بيانات GSE7890 المستقلة. (E) تحليل منحنى القرار (DCA) لتقييم الفائدة السريرية للمخطط البياني في GSE7890. (F) توزيع درجات المخاطر بمقارنة عينات الجدرة والعينات السليمة في GSE7890. الاختصارات: ROC = خصائص تشغيل المستقبِل؛ DCA = تحليل منحنى القرار. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
ترتبط المؤشرات الحيوية التشخيصية بالخصائص المناعية للجدرة
لاستكشاف العلاقة بين المؤشرات الحيوية التشخيصية الستة والبيئة الدقيقة المناعية، تم إجراء تحليل ارتباط لتقييم الروابط بين تعبير المؤشرات الحيوية وتسلل الخلايا المناعية. وكشفت النتائج أن جميع المؤشرات الحيوية الستة كانت مرتبطة بشكل معنوي بعدة مجموعات من الخلايا المناعية المتسللة (الشكل 3A). وتحديداً، ارتبط تعبير FLVCR1 ارتباطاً سلبياً بالخلايا التائية المساعدة الجريبية (الشكل 3B). وأظهر TMCC2 ارتباطات إيجابية مع الخلايا القاتلة الطبيعية والخلايا التغصنية المنشطة، بينما ارتبط ارتباطاً سلبياً بالخلايا التغصنية غير الناضجة والخلايا البائية غير الناضجة (الشكل 3C–F). بالإضافة إلى ذلك، ارتبط تعبير EIF2AK1 ارتباطاً سلبياً بالخلايا القاتلة الطبيعية CD56dim (الشكل 3G)، بينما ارتبط XK ارتباطاً سلبياً بالخلايا الحمضية (الشكل 3H).
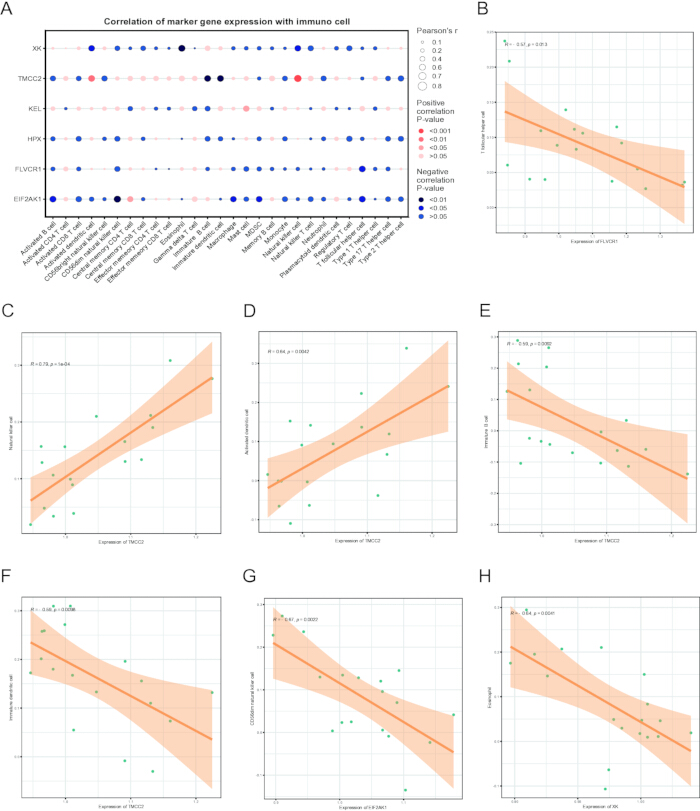
الشكل 3الارتباط بين الجينات المرشحة ذات الصلة باستقلاب الهيم وتسلل الخلايا المناعية. (A(خريطة حرارية توضح الارتباطات بين الجينات المرشحة ومجتمعات الخلايا المناعية. يشير اللون الأحمر إلى ارتباطات إيجابية، بينما يشير اللون الأزرق إلى ارتباطات سلبية.)B). الارتباط بين FLVCR1 التعبير والخلايا التائية المساعدة الجريبية. (سي-إفالارتباطات بين TMCC2 التعبير والخلايا القاتلة الطبيعية، والخلايا الشجرية المنشطة، والخلايا الشجرية غير الناضجة، والخلايا البائية غير الناضجة، على التوالي. (جالارتباط بين EIF2AK1 التعبير والخلايا القاتلة الطبيعية من النوع CD56dim. (هـ). الارتباط بين XK التعبير والخلايا الحمضية. الاختصارات: FLVCR1 = مستقبل فيروس لوكيميا القطط من المجموعة الفرعية C 1؛ TMCC2 = نطاقات عبر الغشائية واللفائف الحلزونية 2؛ EIF2AK1 = كيناز عامل بدء الترجمة حقيقي النواة 2 ألفا 1؛ CD56خافت = عنقود التمايز 56 خافت. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تحليل بيانات ترانسكريبتوم الخلية الواحدة
لتوصيف أنماط تعبير المؤشرات الحيوية التشخيصية المحددة ضمن البيئة المجهرية للجدرة (keloid)، قمنا بتحليل مجموعة بيانات تسلسل الحمض النووي الريبي (RNA) أحادي الخلية GSE163973. وبعد إجراء مراقبة الجودة وتكامل البيانات، تم الاحتفاظ بـ 21,488 خلية عالية الجودة للتحليلات اللاحقة. تم استبعاد الخلايا التي تحتوي على أقل من 200 أو أكثر من 6,000 إجمالي عدد من معرفات الجزيئات الفريدة (UMI)، كما تم تحديد وإزالة الثنائيات المحتملة باستخدام حزمة DoubletDetection. تم اختيار 2,000 جين أظهرت أكبر تباين في التعبير، تلا ذلك خفض الأبعاد والتصور باستخدام تقنية التقريب والإسقاط للمشعب الموحد (UMAP). تم تحديد ما مجموعه 10 مجموعات خلوية رئيسية، شملت الخلايا البطانية، والأرومات الليفية، والألياف العضلية، والخلايا الكيراتينية، والخلايا المناعية، والخلايا البطانية اللمفاوية، والخلايا الغدية، والخلايا العصبية، والخلايا الميلانينية، ومجموعة خلوية غير مصنفة (الشكل 4A,B). وكشف تحليل ملفات التعبير عن أنماط توزيع متميزة للمؤشرات الحيوية التشخيصية حسب نوع الخلية؛ حيث عُبّر عن FLVCR1 بشكل أساسي في الخلايا البطانية والخلايا الميلانينية، بينما أظهر EIF2AK1 تعبيراً مرتفعاً نسبياً في الخلايا العصبية، والخلايا الغدية، والأرومات الليفية. كما تركز HPX بشكل أساسي في الخلايا الميلانينية، بينما أظهر KEL تعبيراً سائداً في الخلايا الغدية (الشكل 4C,D).
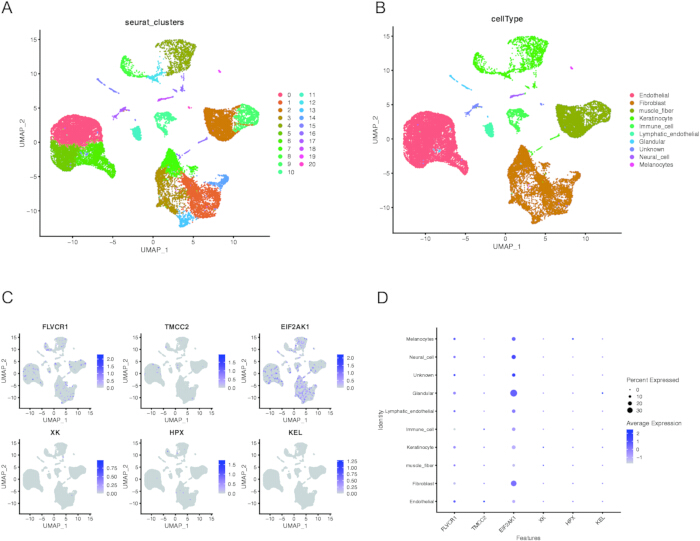
الشكل 4: توزيع المؤشرات الحيوية التشخيصية المرتبطة باستقلاب الهيم في ترانسكريبتوم الخلية الواحدة للجدرة. (أ) مخطط UMAP يوضح 21 عنقوداً خلوياً تضم 21,488 خلية من عينات الجدرة. (ب) تعليقات توضيحية لأنواع الخلايا بناءً على التصنيفات الواردة في الدراسة الأصلية. (ج) مخططات السمات التي توضح تعبير المؤشرات الحيوية التشخيصية المرتبطة باستقلاب الهيم عبر أنواع الخلايا المختلفة. (د) مخطط فقاعي يوضح متوسط مستويات التعبير ونسب الخلايا التي تعبر عن المؤشرات الحيوية التشخيصية المرتبطة باستقلاب الهيم عبر أنواع الخلايا المختلفة. الاختصار: UMAP = التقريب والإسقاط المتشعب الموحد. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تحديد وتحليل شبكة التفاعل للمؤشرات الحيوية التشخيصية المرشحة
لاستكشاف الآليات التنظيمية الكامنة وراء المؤشرات الحيوية التشخيصية المرشحة، تم بناء شبكة تنظيمية من نوع miRNA–mRNA. ولتعزيز موثوقية التفاعلات المتوقعة، تم تحديد جزيئات miRNA المتداخلة التي تستهدف المؤشرات الحيوية المرشحة. تم الحصول على ما مجموعه 282 من جزيئات miRNA التي تتفاعل مع المؤشرات الحيوية التشخيصية الستة، وتظهر الشبكة التنظيمية الناتجة في الشكل 5. ومن الجدير بالذكر أنه تم التنبؤ بأن hsa-miR-34a-5p، وhsa-let-7a-5p، وhsa-let-7d-5p، وhsa-let-7e-5p، وhsa-miR-26b-5p تنظم جميع المؤشرات الحيوية المرشحة الستة في آن واحد.
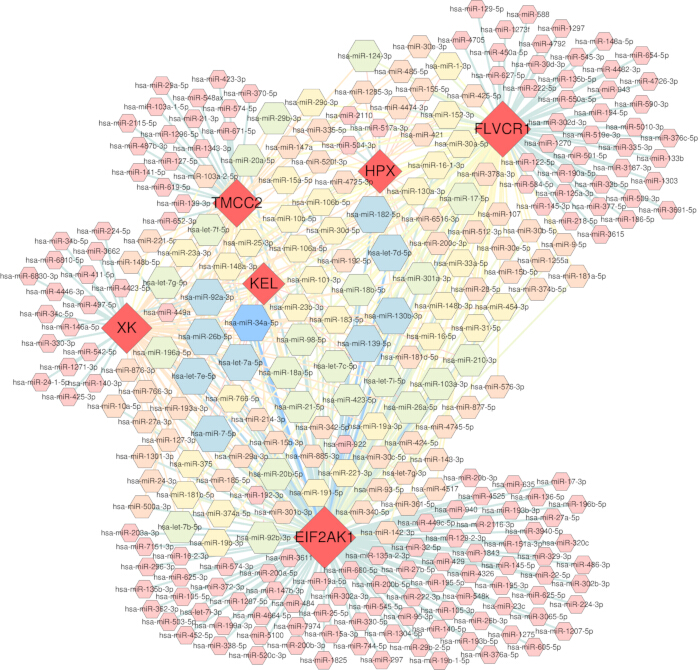
الشكل 5: الشبكة التنظيمية لـ miRNA الخاصة بالمؤشرات الحيوية التشخيصية المرتبطة باستقلاب الهيم. توضح الشبكة العلاقات التنظيمية بين ستة جينات مؤشر حيوي تشخيصي (FLVCR1 و HPX و TMCC2 و KEL و XK و EIF2AK1) وجزيئات miRNA المرتبطة بها. تمثل عقد الجينات المؤشرات الحيوية التشخيصية، بينما تمثل العقد المحيطة جزيئات miRNA. تشير الحواف إلى التفاعلات بين miRNA و mRNA المدعومة تجريبياً. الاختصارات: FLVCR1 = مستقبل فيروس لوكيميا القطط من المجموعة الفرعية C 1؛ HPX = هيموبكسين؛ TMCC2 = النطاقات عبر الغشائية واللولبية الملتفة 2؛ KEL = كيل ميتالو-إندوببتيداز؛ XK = مجموعة الدم Kx المرتبطة بالكروموسوم X؛ EIF2AK1 = عامل بدء الترجمة حقيقي النواة 2 ألفا كيناز 1؛ miRNA = حمض ريبوزي نووي ميكروي؛ mRNA = حمض ريبوزي نووي رسول. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
التحقق التجريبي من تعبير FLVCR1 وتحليل الإرساء الجزيئي للمركبات العلاجية المحتملة
للتحقق من صحة النتائج المعلوماتية الحيوية وتأكيد الصلة الوظيفية للجين المحوري المحدد، قمنا بتقييم تعبير FLVCR1 تجريبياً في PKF وNHDF. وقد أظهرت تحليلات qRT-PCR واللطخة الغربية (western blot) باستمرار أن تعبير FLVCR1 كان مرتفعاً بشكل ملحوظ في الخلايا الليفية للجدرة مقارنة بالمجموعات الضابطة الطبيعية (الشكل 6A–C، الشكل التكميلي S1، والجدول التكميلي S4). ويدعم هذا التعبير الخلوي المرتفع الاحتمالية المرجحة لمشاركة الخلل في استقلاب الهيم المرتبط بـ FLVCR1 في إمراضية الجدرة.
نظراً للمشاركة المحتملة لـ FLVCR1 في التغيرات المناعية المرتبطة باستقلاب الهيم، سعينا بعد ذلك إلى تحديد مركبات علاجية محتملة يمكنها استهداف FLVCR1 بشكل مباشر لقطع هذا المحور المرضي. أُجري فحص افتراضي عالي الإنتاجية باستخدام مكتبة مركبات من الطب الصيني التقليدي (TCM) وبنية البروتين التي تم إعدادها. وقد اختيرت المركبات العشرين ذات درجات الارتباط الأكثر ملاءمة لإجراء مزيد من التقييم (الجدول التكميلي S5). وبشكل عام، تشير طاقة الارتباط المنخفضة إلى ألفة ارتباط أقوى، وتعتبر طاقات الالتحام التي تقل عن 5- كيلو كالوري/مول مؤشرًا على تفاعلات مستقرة بين الربيطة والبروتين. ومن بين المركبات التي تم فحصها، أظهر كل من (+)-Gallocatechin و (−)-Epicatechin و (−)-Gallocatechin و Cyanidin (chloride) ألفات ارتباط ملائمة تجاه FLVCR1. ومن الملاحظ أن (+)-Gallocatechin أظهر أقوى تفاعل مع FLVCR1 من خلال تكوين أربع روابط هيدروجينية مع GLU214 وASN245 وGLN246 وGLN471، مما يشير إلى نمط ارتباط مستقر بين الربيطة والبروتين (الشكل 6D–Gتُسلط هذه النتائج الضوء على مركب (+)-gallocatechin كمرشح واعد للتدخل العلاجي القائم على الآلية والذي يستهدف FLVCR1.
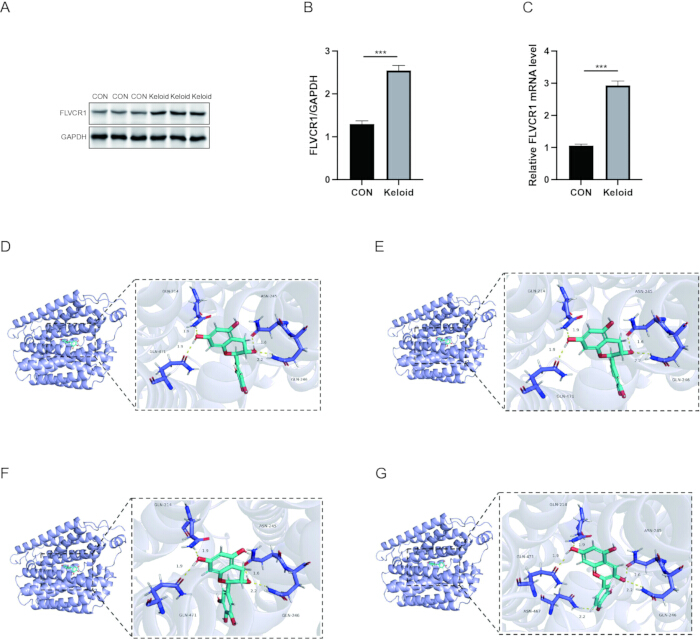
الشكل 6: التحقق التجريبي من تعبير FLVCR1 والرسو الجزيئي لمركبات محتملة تستهدف FLVCR1. (A) صور تمثيلية من لطخة ويسترن توضح تعبير بروتين FLVCR1 في مجموعتي CON والندبة المخلبية (keloid). استُخدم GAPDH كضابط تحميل. (B) تقدير كمي لمستويات بروتين FLVCR1 بعد تسويتها مع GAPDH. (C) تحديد مستويات التعبير النسبي لـ mRNA الخاص بـ FLVCR1 في الخلايا الليفية لمجموعتي CON والندبة المخلبية باستخدام qRT-PCR. استُخدم GAPDH كمرجع داخلي. (D–G) تمثيلات ثلاثية الأبعاد لأنماط الارتباط المتوقعة بين FLVCR1 ومركبات جزيئية صغيرة مختارة: (D) (+)-Gallocatechin. (E) (-)-Epicatechin. (F) (-)-Gallocatechin. (G) Cyanidin (Chloride). الاختصارات: FLVCR1 = feline leukemia virus subgroup C receptor 1؛ CON، المجموعة الضابطة؛ GAPDH، glyceraldehyde-3-phosphate dehydrogenase؛ qRT-PCR، تفاعل البوليميراز المتسلسل الكمي للنسخ العكسي؛ SD، الانحراف المعياري. يتم عرض البيانات كمتوسط ± SD. الدلالة الإحصائية: ns، P > 0.05؛ *، P < 0.05؛ **، P < 0.01؛ ***، P < 0.001؛ و ****، P < 0.0001. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
تأكيد استقرار معقد FLVCR1–(+)-Gallocatechin باستخدام محاكاة الديناميكيات الجزيئية
لفحص موثوقية نمط ارتباط الربيطة بالبروتين المتوقع، تم إجراء محاكاة للديناميكا الجزيئية (MD) لمعقد FLVCR1–(+)-gallocatechin. ركز التحليل على ما إذا كان المعقد قد ظل مستقراً هيكلياً بمرور الوقت، وما إذا كان ارتباط الربيطة قد أدى إلى تغيير السلوك التشكيلي للبروتين، وذلك باستخدام تحليل جذر متوسط مربع الانحراف (RMSD)، وجذر متوسط مربع التقلب (RMSF)، ونصف قطر الدوران (Rg)، ومساحة السطح المتاحة للمذيب (SASA)، وتحليل الروابط الهيدروجينية، وحسابات MM/GBSA. أما تحليل RMSD (الشكل 7أأظهرت النتائج أن كلاً من البروتين الفارغ (apo protein) والمعقد المرتبط بالرابطة قد شهدا تقلبات أولية خلال أول 20 نانو ثانية، تلاها استقرار تدريجي، مما يشير إلى أن الأنظمة قد وصلت إلى حالة الاتزان خلال عملية المحاكاة. وبعد مرحلة الاتزان، ظلت قيمة جذر متوسط مربع الانحراف (RMSD) لمعقد FLVCR1–(+)-Gallocatechin دون 0.2 نانومتر، مما يشير إلى أن ارتباط الرابطة قد ساهم في الحفاظ على الاستقرار البنيوي لبروتين FLVCR1. أما تحليل جذر متوسط مربع التقلب (RMSF) (الشكل 7Bأظهرت ( ) أن معظم البقايا أبدت تقلبات محدودة طوال فترة المحاكاة، مما يشير إلى الحفاظ على السلامة العامة للبروتين، بينما قد تمثل العديد من المناطق المرنة مناطق حلقية تشارك في استيعاب الربيطة. علاوة على ذلك، فإن استقرار ملفات نصف قطر الدوران (Rg) ومساحة السطح المتاحة للمذيب (SASA) (الشكل 7ج،دأظهر ذلك أن المعقد حافظ على تشكيل مدمج، دون وجود تمدد بنيوي واضح أو تغيرات في التعرض للمذيب. وأشار تحليل الروابط الهيدروجينية (الشكل 7Eكشف (أن معقد FLVCR1–(+)-Gallocatechin حافظ على تفاعلات جزيئية مستمرة، مع تشكل ما يقرب من 3-4 روابط هيدروجينية أثناء المحاكاة، مما يدعم استقرار الارتباط بين اللجين والبروتين. كما أظهر تحليل MM/GBSA أن معقد FLVCR1–(+)-Gallocatechin قد أظهر طاقة حرة ملائمة للارتباط (Δجإجمالي = −34.87 ± 4.13 كيلوكالوري/مول) (الجدول التكميلي S6أشار تحليل تفكيك الطاقة إلى أن تفاعلات فان دير فالس (Δقوى فان دير فالس = −46.34 ± 2.16 كيلوكالوري/مول) والتفاعلات الكهروستاتيكية (Δهـكهرباء = −14.09 ± (3.45 كيلو كالوري/مول) كانت المساهمات المواتية الرئيسية في الارتباط، على الرغم من المساهمة غير المواتية لطاقة الذوبان القطبية (Δجالذوبان (Solvation) = 25.55 ± 0.74 كيلو كالوري/مول) (الجدول التكميلي S6وبشكل جماعي، أظهرت نتائج محاكاة الديناميكا الجزيئية (MD simulation) هذه أن (+)-Gallocatechin قد شكل معقداً مستقراً مع FLVCR1 وعزز ذلك من موثوقية نمط الارتباط المتوقع عن طريق الالتحام الجزيئي.
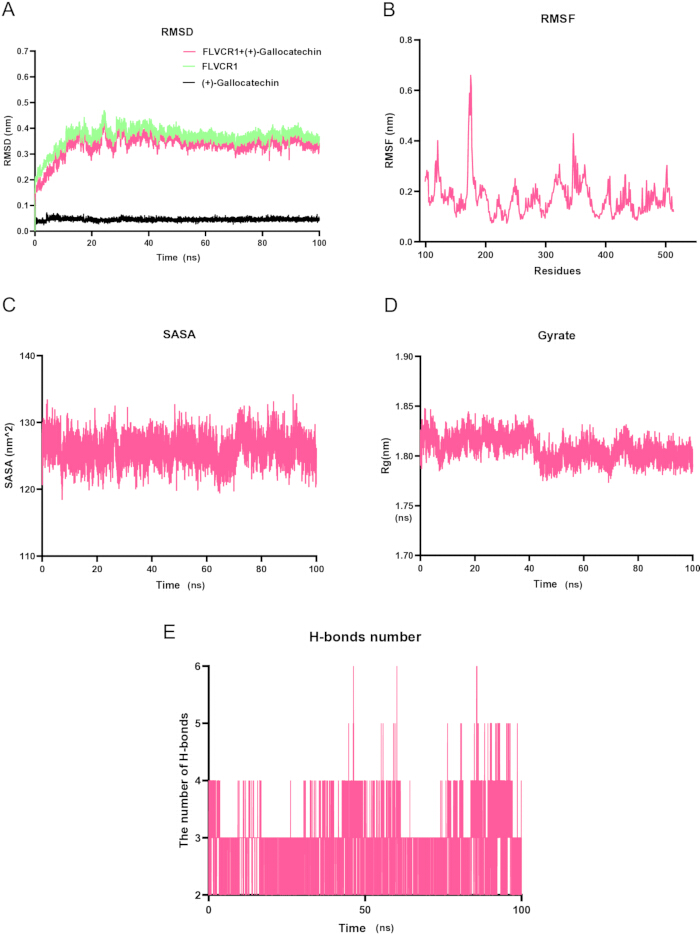
الشكل 7: تحليل محاكاة الديناميكيات الجزيئية لمعقد FLVCR1–(+)-Gallocatechin. (A) مخططات RMSD لبروتين FLVCR1 غير المرتبط (apo) ومعقد FLVCR1–(+)-Gallocatechin خلال محاكاة الديناميكيات الجزيئية لمدة 100 ns. (B) مخطط RMSF الذي يوضح تقلبات مستوى البقايا لبروتين FLVCR1 أثناء المحاكاة. (C) مخطط SASA الذي يوضح التغيرات في مساحة السطح المتاحة للمذيب لمعقد FLVCR1–(+)-Gallocatechin. (D) مخطط Rg الذي يقيم مدى تماسك معقد FLVCR1–(+)-Gallocatechin أثناء المحاكاة. (E) تحليل الروابط الهيدروجينية الذي يوضح التفاعلات الديناميكية بين الجزيئات بين FLVCR1 و (+)-Gallocatechin طوال فترة المحاكاة. الاختصارات: FLVCR1 = feline leukemia virus subgroup C receptor 1؛ RMSD = root mean square deviation؛ RMSF = root mean square fluctuation؛ SASA = solvent-accessible surface area؛ Rg = radius of gyration. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
توفر البيانات:
يمكن الوصول إلى مجموعات بيانات النسخ المتوفرة علنًا والتي تم تحليلها في هذه الدراسة من خلال قاعدة بيانات Gene Expression Omnibus (GEO) تحت أرقام الوصول GSE44270 وGSE7890 وGSE163973. أما البيانات المصدرية الناتجة عن هذه الدراسة والتي استند إليها التحقق التجريبي، بما في ذلك قياسات qRT-PCR، وصور western blot الأصلية، وبيانات التكميم لـ western blot، فهي متوفرة في الشكل التكميلي S1، والجدول التكميلي S1، والجدول التكميلي S2، والجدول التكميلي S3، والجدول التكميلي S4. كما تتوفر نتائج الالتحام الجزيئي وبيانات طاقة الارتباط الحرة MM/GBSA في الجدول التكميلي S5 والجدول التكميلي S6.
الشكل التكميلي S1: البيانات الأصلية لطريقة لطخة ويسترن.يرجى الضغط هنا لتحميل هذا الملف.
الجدول التكميلي S1: الجينات المرتبطة باستقلاب الهيم.يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي S2: تسلسلات البادئات للجينات المختارة. يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي S3: مناهج التعلم الآلي لتحديد المؤشرات الحيوية التشخيصية المحتملة في الجدرة. يرجى النقر هنا لتحميل هذا الملف.
الجدول التكميلي S4: البيانات الخام التي تدعم التحقق التجريبي من تعبير FLVCR1. يرجى الضغط هنا لتنزيل هذا الملف.
الجدول التكميلي S5: أفضل 20 مركباً مرشحاً تم تحديدها عن طريق الالتحام الجزيئي مع FLVCR1.يرجى النقر هنا لتنزيل هذا الملف.
الجدول التكميلي S6: تحليل الطاقة الحرة للارتباط باستخدام طريقة MM/GBSA لمعقد FLVCR1–(+)-Gallocatechin.يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
تحدد هذه الدراسة ارتباطاً محتملاً بين خلل استقلاب الهيم، والتعبير عن FLVCR1، وتغيرات البيئة المجهرية المناعية في تكوين الجدرة (keloid). ومن خلال دمج تحليل النسخ الشامل وتحليل النسخ أحادي الخلية، أثبتنا أن FLVCR1 يمثل محوراً جزيئياً يربط بين نقص تصدير الهيم وإعادة البرمجة المناعية المرضية، مما يضع الجدرة ضمن الطيف الناشئ للاضطرابات "الأيضية-التليفية" (metabo-fibrotic)23,24,25. وتتأكد الأهمية المحتملة لـ FLVCR1 من خلال أدلة متوافقة عبر مستويات تحليلية متعددة؛ حيث كشف تحليل النسخ الشامل عن زيادة تنظيم كبيرة في تعبيره داخل أنسجة الجدرة مع قدرة تشخيصية قوية، بينما حدد تخطيط الدقة أحادية الخلية موضع تعبيره بشكل أساسي في الخلايا البطانية والخلايا الميلانينية—وهما نوعان من الخلايا متورطان بشكل حاسم في إمراضية الجدرة من خلال تكوين الأوعية الدموية الشاذ وفرط التصبغ، على التوالي26,27. والأكثر إقناعاً هو أن تعبير FLVCR1 أظهر ارتباطاً سلبياً قوياً مع الخلايا التائية المساعدة الجريبية (Tfh)، وهي مجموعة فرعية من الخلايا اللمفاوية المعروفة بشكل متزايد بدورها في تعزيز المناعة المائلة نحو Th2 وترسيب الكولاجين في البيئات المجهرية التليفية28. وقد أظهرت الدراسات السابقة أن تصدير الهيم بوساطة FLVCR1 يشارك في نضج الخلايا التغصنية وعرض المستضدات29، مما يشير إلى وجود صلة محتملة بين توازن الهيم المرتبط بـ FLVCR1 والتنظيم المناعي. وبناءً على ذلك، فإن زيادة تنظيم FLVCR1 الملحوظة وارتباطها السلبي مع ارتشاح خلايا Tfh قد تعكس تغيرات في التوازن المناعي، والتي قد تشمل السيتوكينات المحفزة للتليف المرتبطة بخلايا Tfh مثل IL-4 وIL-1329,30,31.
علاوة على ذلك، من المرجح أن يؤدي تراكم الهيم داخل الخلايا الناتج عن خلل وظيفة FLVCR1 إلى تنشيط الجسيم الالتهابي NLRP3؛ وهي آلية موثقة جيداً في التليف الكبدي، حيث يعمل الهيم كنمط جزيئي مرتبط بالتلف (DAMP) يحفز الالتهاب العقيم32,33,34. ومن شأن هذا التنشيط للجسيم الالتهابي أن يعزز إفراز IL-1β/IL-18، مما يدفع استقطاب البلاعم من النوع M2 عبر إشارات TLR4/NF-κB، ويخلق حلقة ذاتية الاستدامة من الإجهاد التأكسدي وتنشيط الخلايا الليفية35,36. وبشكل جماعي، تدعم هذه البيانات اعتبار FLVCR1 مؤشراً حيوياً مرشحاً ومساهماً محتملاً في التفاعلات بين استقلاب الهيم والاستجابة المناعية في الجدرة؛ ومع ذلك، فإن التسلسل الميكانيكي المقترح يتطلب تحققاً وظيفياً مباشراً. حيث يؤدي احتجاز الهيم داخل الخلايا أولاً إلى إحداث تلف تأكسدي وتنشيط الجسيم الالتهابي، وهو ما يؤدي لاحقاً إلى خلل في وظيفة الخلايا التغصنية، مما يعزز الانحراف نحو الخلايا التائية المساعدة الجريبية والاستجابات المناعية من نوع Th2؛ وهذا الانحراف المناعي يدفع بدوره استقطاب البلاعم نحو النمط الظاهري M2، مما يؤدي في النهاية إلى تنشيط الخلايا الليفية وتطور عملية التليف.
بعيدًا عن عمل FLVCR1 بمفرده، يكشف الخلل التآزري في جميع المؤشرات الحيوية الستة عن انهيار منسق في توازن الهيم عبر عدة عقد تنظيمية. وقد يمثل TMCC2، الذي يرتبط إيجابيًا بالخلايا التغصنية المنشطة وسلبيًا بالمجموعات غير الناضجة، آلية تعويضية تحاول استعادة الكفاءة المناعية وسط إجهاد الهيم37,38. أما EIF2AK1، الذي يتم التعبير عنه بكثافة في أرومات ليفية للجدرة وخلايا غدية، فيعمل كمستشعر جزيئي مباشر لزيادة الهيم، حيث يقوم بفسفرة eIF2α لتثبيط تخليق البروتين بشكل عام مع زيادة تنظيم جينات الاستجابة للإجهاد بشكل انتقائي39,40,41. وهذا يجعل EIF2AK1 بمثابة الجسر الحاسم الذي يترجم تراكم الهيم إلى تحول في النمط الظاهري للأرومات الليفية، مما قد يفسر سبب إظهار أرومات ليفية الجدرة مقاومة متزايدة لموت الخلايا المبرمج وإنتاجًا مفرطًا للكولاجين42,43,44. وأظهر HPX، وهو الكاسح الأساسي للهيم في البلازما، تعبيرًا محدودًا في الخلايا الميلانينية، مما يشير إلى محاولة ذاتية من الخلية لتخفيف سمية الهيم داخل المقصورات الغنية بالصبغة45,46,47. كما يشير الخلل المتزامن في XK وKEL إلى تورط آليات التعامل مع الهيم في السلالة الحمراء في إمراضية الجدرة، وهي نتيجة لها تداعيات مثيرة للاهتمام لفهم سبب ظهور الجدرات تكرارًا في مواقع الصدمات المصحوبة بنزيف مجهري. وبدلاً من النظر إلى هذه الجينات الستة كعلامات مستقلة، فإننا نفسر خللها الجماعي كدليل على فشل شامل في النظام الخاص بتجزئة الهيم، حيث يتقارب ضعف التصدير (FLVCR1)، والاستشعار (EIF2AK1)، والكنس (HPX)، والنقل الغشائي (XK, KEL) لخلق بيئة مجهرية غنية بالهيم ومحفزة للتليف.
يتم تعزيز هذا النموذج المناعي-الأيضي بطبقة فوق جينية مقنعة: حيث حددنا شبكة ceRNA يساهم فيها انخفاض تنظيم miRNAs محددة (مثل عائلة let-7 و miR-34a-5p) في إلغاء كبح المسارات الليفية وتلك المتعلقة بأيض الهيم في آن واحد، على الرغم من أن هذا النموذج التنظيمي يتطلب مزيداً من التحقق23. وتوضح الدقة المكانية التي يوفرها تحليل الخلية الواحدة التنسيق الخلوي الكامن وراء هذه العملية، مما يظهر كيف أن الخلل الأيضي في الخلايا الهيكلية يعمل بنشاط على تهيئة البيئة المجهرية الغنية بالمناعة من خلال إشارات الهيم المجاورة (paracrine heme signaling)، وبذلك تتحول رؤيتنا من منظور "النسيج الكلي" إلى نموذج نظام بيئي خلوي ديناميكي48,49,50. وقد يؤدي تراكم الهيم في الخلايا البطانية إلى تعزيز التسرب الوعائي وخروج الكريات البيضاء عبر تحفيز heme oxygenase-1 وزيادة تنظيم جزيئات الالتصاق، مما يؤدي إلى تكوين البيئة المجهرية الغنية بالمناعة الملاحظة في الجدرة51,52,53. وبالتزامن مع ذلك، يتوافق تعبير FLVCR1 في الخلايا الميلانينية مع الملاحظات السريرية لفرط تصبغ الجدرة، ويشير إلى نقاط ضعف أيضية مشتركة بين المسارات الصبغية والليفية—والتي قد تكون بوساطة استجابات الإجهاد التأكسدي54,55. ويحول هذا التخطيط المكاني فهمنا من منظور "النسيج الكلي" إلى نموذج نظام بيئي خلوي حيث يشكل الخلل الأيضي في الخلايا الهيكلية (البطانية، والخلايا الميلانينية) سلوك الخلايا المناعية بنشاط من خلال إشارات الهيم المجاورة.
من وجهة نظر انتقالية، حقق المخطط البياني (nomogram) الخاص بنا، والذي يدمج جميع المؤشرات الحيوية الستة، دقة تشخيصية شبه مثالية، متفوقاً بشكل كبير على أي مؤشر منفرد، ومظهراً فائدة سريرية صافية واضحة من خلال تحليل منحنى القرار. والأكثر إثارة للاهتمام أن الالتحام الجزيئي حدد (+)-gallocatechin — وهو بوليفينول نشط بيولوجياً يتوفر بكثرة في الشاي الأخضر والأعشاب الطبية الصينية التقليدية — كـ ligand عالي الألفة لـ FLVCR1، حيث يشكل روابط هيدروجينية مستقرة مع GLU-214 و ASN-245 و GLN-246 و GLN-471. وتعتبر هذه النتيجة مقنعة بشكل خاص بالنظر إلى الأدلة السابقة التي تشير إلى أن الكاتيكينات تثبط تخليق الكولاجين، وتمنع إفراز عامل النمو المحول بيتا 1 (transforming growth factor-beta 1)، وتخفف من الإجهاد التأكسدي في الخلايا الليفية للجدرة (keloid fibroblasts)56,57,58. ونحن نفترض أن (+)-gallocatechin قد يعمل على استقرار تشكيل FLVCR1 لتعزيز قدرة تصدير الهيم، وبالتالي قطع المحفز الأيضي للتليف من مصدره — وهي استراتيجية تختلف جذرياً عن العلاجات الحالية التي تكتفي بتثبيط إنتاج الكولاجين في المراحل النهائية. وما إذا كان هذا النوع من التدخل الأيضي يمكن أن يؤثر على تكرار ظهور الجدرة يتطلب مزيداً من التحقق التجريبي والسريري.
بالطبع، تعاني هذه الدراسة أيضاً من بعض المحدوديات. أولاً، لا تزال تحليلاتنا حسابية إلى حد كبير، والارتباط الملحوظ بين تعبير FLVCR1 وتسلل الخلايا التائية المساعدة الجريبية (Tfh) لا يثبت علاقة سببية مباشرة. لذا، هناك حاجة إلى التحقق من الخلايا التائية المساعدة الجريبية باستخدام قياس التدفق الخلوي وإجراء دراسات وظيفية تتضمن تثبيط أو زيادة تعبير FLVCR1 في أرومات الليف في الجدرة، جنباً إلى جنب مع اختبارات التفاعل بين أرومات الليف والخلايا المناعية أو اختبارات الأوساط المكيفة، لتوضيح الدور المحتمل لـ FLVCR1 في التنظيم المناعي. ثانياً، قد يؤدي صغر حجم العينة نسبياً إلى إدخال حالة من عدم اليقين والتفاؤل في الأداء المقدر لبصمة الجينات الستة. وعلى الرغم من إجراء التحقق الداخلي، إلا أن التقييم الموثوق للأداء التشخيصي والمعايرة لا يزال محدوداً. وبناءً على ذلك، يجب اعتبار لوحة الجينات الستة بصمة جزيئية استكشافية تتطلب مزيداً من التحقق في مجموعات أكبر ومستقلة. ثالثاً، تتطلب مجموعة بيانات الخلية الواحدة توسعة لالتقاط التباين بين المرضى والمجموعات الخلوية النادرة بشكل أفضل. رابعاً، من شأن التحقق من تعبير المؤشرات الحيوية على مستوى البروتين وتحديد تموضعها المكاني عبر الكيمياء النسيجية المناعية أن يعزز الأهمية السريرية لنتائجنا. وأخيراً، بينما يشير الإرساء الجزيئي إلى ارتباط محتمل بين (+)-gallocatechin و FLVCR1، فإن هناك حاجة إلى اختبارات الارتباط in vitro ودراسات الفعالية in vivo قبل الانتقال إلى التطبيق السريري. وبالرغم من هذه المحدوديات، توفر نتائجنا إطاراً متعدد الأبعاد يربط بين استقلاب الهيم المرتبط بـ FLVCR1 والتغيرات المناعية في الجدرة، وتحدد مؤشرات حيوية جزيئية ومرشحات علاجية محتملة لمزيد من الاستقصاء.
الإفصاحات
يصرح المؤلفون بعدم وجود أي تضارب في المصالح.
إسهامات المؤلفين
ساهمت Qiuyan Yang في تصميم الدراسة. وساهم Jianping Zhang في جمع البيانات. كما ساهمت كل من Qiuyan Yang وXiaofang Sun في التحليل الإحصائي. وساهمت Qiuyan Yang وJing Wang في إعداد الرسوم التوضيحية وإتمام المخطوطة. وقد قرأ جميع المؤلفين النسخة النهائية من المخطوطة ووافقوا عليها.
شكر وتقدير
نُعرب عن خالص امتناننا للباحثين الذين قاموا بإنشاء ومشاركة مجموعات البيانات GSE44270 وGSE7890 وGSE163973 علنًا من خلال قاعدة بيانات Gene Expression Omnibus (GEO).
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| AmberTools | مشروع أمبر (Amber Project) | https://ambermd.org/AmberTools.php | الإصدار 22؛ توليد بارامترات الربيطة باستخدام مجال القوة GAFF |
| مضاد FLVCR1 | Proteintech | 26841-1-AP | |
| مضاد GAPDH | Proteintech | 60004-1-Ig | |
| أوتو دوك فينا | معهد سكريپس للأبحاث | https://vina.scripps.edu/ | الإصدار 1.2.3؛ الإرساء الجزيئي والتنبؤ بألفة ارتباط الربيطة |
| أدوات أوتودوك (AutoDockTools) | معهد سكريبس للأبحاث | https://ccsb.scripps.edu/autodocksuite/adt/ | الإصدار 1.5.6؛ تحضير الرابط والمستقبل للرسو الجزيئي |
| طقم مقايسة البروتين بطريقة BCA | Servicebio | G2026 | |
| مزيج تخليق cDNA لتقنية qPCR مع إنزيم dsDNase | يونيون سكريبت | النسخ العكسي من أجل تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR) | |
| كيم بيو 3 دي | PerkinElmer | https://revvitysignals.com/products/research/chemdraw | الإصدار 14.0؛ التحسين التشكلي ثلاثي الأبعاد وتقليل الطاقة للربيطات |
| نظام التصوير بالتلألؤ الكيميائي | تصوير حزم لطخة ويسترن | ||
| حزمة DoubletDetection | جيثب / جوناثان شور | https://github.com/JonathanShor/DoubletDetection | كشف وإزالة المزدوجات المتوقعة في تحليل تسلسل الحمض النووي الريبي أحادي الخلية (scRNA-seq) |
| ركيزة التلألؤ الكيميائي ECL | الكشف عن إشارة لطخة ويسترن | ||
| مصل العجل الجنيني | تركيز نهائي 2%؛ مكمل لوسط زراعة الخلايا الليفية | ||
| وسط نمو الخلايا الليفية 2 | PromoCell | C-23020 | |
| بادئات FLVCR1 وGAPDH | الجدول التكميلي S2 | تضخيم الجينات المستهدفة والمرجعية بواسطة تقنية تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR) | |
| غاوسي | Gaussian, Inc. | https://gaussian.com/ | Gaussian 16W؛ حساب شحنات RESP الذرية لمعايرة بارامترات اللجين |
| جهاز الفصل الكهربائي للهلام | فصل البروتينات باستخدام الفصل الكهربائي للهلام بوجود دوديسيل كبريتات الصوديوم (SDS-PAGE) | ||
| حزمة GEOquery | بايوكونداكتور | https://bioconductor.org/packages/GEOquery/ | الإصدار 2.68.0؛ استرجاع التعبير الجيني والبيانات الوصفية من قاعدة بيانات GEO |
| حزمة ggplot2 | كرين | https://cran.r-project.org/package=ggplot2 | الإصدار 4.0.2؛ تصور البيانات |
| حزمة glmnet | شبكة أرشيف R الشاملة (CRAN) | https://cran.r-project.org/package=glmnet | الإصدار 4.1.10؛ اختيار الميزات بطريقة LASSO |
| غرومكـس | فريق تطوير GROMACS | https://www.gromacs.org/ | الإصدار 2022.3؛ محاكاة الديناميكيات الجزيئية وتحليل المسار |
| مزيج GS AntiQ qPCR SYBR Green Fast Mix (Universal) | الجينات و | SQ410 | |
| GSE163973 | قاعدة بيانات GEO | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE163973 | 3 عينات من الجدرة (كيلويد)؛ تحليل التعبير الجيني أحادي الخلية |
| GSE44270 | قاعدة بيانات GEO | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE44270 | 18 عينة جدرة و14 عينة طبيعية؛ التعبير التفاضلي وفحص المؤشرات الحيوية |
| GSE7890 | قاعدة بيانات GEO | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE7890 | 10 عينات من الجدرة و9 عينات طبيعية؛ التحقق المستقل من المؤشرات الحيوية التشخيصية |
| حزمة GSVA | بايوكونداكتور | https://bioconductor.org/packages/GSVA/ | الإصدار 1.48.3؛ تحليل ارتشاح الخلايا المناعية القائم على تحليل إثراء المجموعات الجينية المفردة (ssGSEA) |
| جسم مضاد من الماعز ضد IgG للفأر مقترن بإنزيم HRP | Abcam | ab97040 | |
| جسم مضاد من الماعز ضد IgG الأرنب المقترن بـ HRP | Abcam | ab97051 | |
| ثاني أكسيد الكربون المرطب2 حضّانة | 37 °C، 5% CO22صيانة خلايا NHDF وخلايا PKF | ||
| ImageJ | المعاهد الوطنية للصحة | https://imagej.nih.gov/ij/ | تحديد كمية شدة حزم لطخة ويسترن |
| إنسولين | 5 μg/mL التركيز النهائي؛ مكمل لوسط زراعة الخلايا الليفية | ||
| قاعدة بيانات البصمات الجزيئية (MSigDB) | معهد برود (Broad Institute) | https://www.gsea-msigdb.org/gsea/msigdb | الإصدار 2024.1.Hs؛ مصدر مجموعات الجينات المرتبطة باستقلاب الهيم |
| نتوورك أناليست | نظام NetworkAnalyst | https://www.networkanalyst.ca/ | الإصدار 3.0؛ بناء شبكة التفاعل بين miRNA وmRNA |
| خلايا NHDF | بروسل | CP-H106 | |
| حليب مجفف خالٍ من الدسم | محلول بتركيز 5%؛ حجب الغشاء لتحليل لطخة ويسترن | ||
| غشاء ختم بصري أو أغطية | إحكام إغلاق تفاعلات qRT-PCR | ||
| محلول ملحي منظم بالفوسفات (PBS) | بروسل | PB180327 | |
| معرف بنك بيانات البروتين (PDB ID): 8UBZ | RCSB PDB | https://www.rcsb.org/structure/8UBZ | بنية البروتين البشري FLVCR1؛ مصدر بنية البروتين FLVCR1 من أجل الفرز الافتراضي القائم على البنية |
| مثبطات الفوسفاتيز | مكمل لمنظم تحلل البروتين | ||
| بي كيه إف | بروسل | GCP-H235 | |
| فلوريد فينيل ميثيل سلفونيل (PMSF) | Servicebio | G2008-1ML | |
| حزمة pROC | شبكة أرشيف R الشاملة (CRAN) | https://cran.r-project.org/package=pROC | الإصدار 1.19.0.1؛ منحنى خصائص تشغيل المستقبِل (ROC) وتحليل المساحة تحت المنحنى (AUC) |
| مزيج مثبطات البروتياز | روش | 4693124001 | |
| جهاز نقل البروتين | نقل البروتينات إلى غشاء PVDF | ||
| غشاء PVDF | ميليبور | IPVH08100 | |
| باي مول | شرويدرöدينجر، ش.م.م (dinger, LLC) | https://pymol.org/ | الإصدار 2.6.1؛ تصور وتحليل وضعيات إرساء البروتين والربيطة والتفاعلات الجزيئية |
| أطباق أو أنابيب qRT-PCR | إعداد تفاعل qRT-PCR | ||
| آر | مؤسسة R للحوسبة الإحصائية | https://www.r-project.org/ | الإصدار 4.3.1؛ التحليلات الإحصائية والمعلوماتية الحيوية |
| حزمة randomForest | شبكة أرشيف R الشاملة (CRAN) | https://cran.r-project.org/package=randomForest | الإصدار 4.7.1.2؛ اختيار الميزات باستخدام الغابة العشوائية |
| بيوسنتيز الهيم حسب ريكتوم؛ تحلل الهيم حسب ريكتوم؛ بيوسنتيز الهيم حسب ويكي باثوايز؛ التخلص من الهيم في البلازما حسب ريكتوم؛ استقلاب الهيم كمعلم بارز | قاعدة بيانات البصمات الجزيئية (MSigDB) | https://www.gsea-msigdb.org/gsea/msigdb | الإصدار 2024.1.Hs؛ 283 جيناً فريداً بعد الدمج؛ تعريف الجينات المرتبطة باستقلاب الهيم |
| نظام تفاعل البوليميراز المتسلسل في الوقت الحقيقي (Real-time PCR) | تضخيم وكشف تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي (qRT-PCR) | ||
| عامل نمو الأرومة الليفية الأساسي البشري المؤتلف | تركيز نهائي 1 نانوغرام/مل؛ مكمل لوسط زراعة الخلايا الليفية | ||
| محلول ريبا المنظم (RIPA buffer) | Servicebio | G2002 | |
| حزمة rms | شبكة أرشيف R الشاملة (CRAN) | https://cran.r-project.org/package=rms | الإصدار 6.7.1؛ إنشاء المخطط البياني (Nomogram) |
| كواشف SDS-PAGE أو الهلامات مسبقة الصب | فصل البروتينات باستخدام الفصل الكهربائي للهلام بوجود دوديسيل كبريتات الصوديوم (SDS-PAGE) | ||
| حزمة Seurat | كرين | https://satijalab.org/seurat/ | الإصدار 5.4.0؛ المعالجة المسبقة لبيانات تسلسل الحمض النووي الريبي أحادي الخلية (scRNA-seq)، والتجميع، والتصور البياني |
| تاربيز (TarBase) | أدوات DIANA | https://carolina.imis.athena-innovation.gr/diana_tools/ | الإصدار 9.0؛ مصدر التفاعلات بين miRNA وmRNA المدعومة تجريبياً |
| طقم استخلاص الحمض النووي الريبي الكلي II (Total RNA Kit II) | أوميغا | R6934-01 | |
| مكتبة المركبات النشطة في الطب الصيني التقليدي | مصدر المركبات المرشحة للفحص الافتراضي | ||
| محلول ملحي منظم بـ Tris وTween | تحضير محلول الحجب وغسيل الغشاء | ||
| مزيج UnionScript لتخليق الحمض النووي الريبوزي منقوص الأكسجين التكميلي للشريط الأول (مع dsDNase) لـ qPCR | الجينات و | SR511 |
المراجع
- Dirand Z, et al. Macrophage phenotype is determinant for fibrosis development in keloid disease. Matrix Biol. 2024;128:79-92.
- Fang X, et al. Hypertrophic scarring and keloids: epidemiology, molecular pathogenesis, and therapeutic interventions. MedComm (2020). 2025;6(10):e70381.
- Adler R, et al. Pentoxifylline and long-term risk of keloid formation: a real-world 10-year outcomes study using TriNetX. J Am Acad Dermatol. 2026;94(5):1561-3.
- Banerjee P, et al. Anti-fibrotic properties of a decellularized extracellular matrix scaffold from porcine small intestinal submucosa in normal human and keloid fibroblasts. Int J Mol Sci. 2025;26(24):11764.
- Chang YH, McGrath JA, Hsu CK. Regression of extensive keloids during imatinib therapy for gastrointestinal stromal tumor. JAMA Dermatol. 2025;161(12):1293-4.
- Wang QR, et al. CCL17 drives fibroblast activation in the progression of pulmonary fibrosis by enhancing the TGF-β/Smad signaling. Biochem Pharmacol. 2023;210:115475.
- Higuchi Y, et al. Cavin-2 promotes fibroblast-to-myofibroblast trans-differentiation and aggravates cardiac fibrosis. ESC Heart Fail. 2024;11(1):167-78.
- Zhang H, et al. Plasma apolipoprotein E protein attenuates pulmonary fibrosis through LRP1 and PLAU dual receptor-mediated TGF-β/Smad inhibition. J Adv Res. 2025. doi:10.1016/j.jare.2025.12.045.
- Chen Q, et al. Immune imbalance drives keloid pathogenesis: emerging targets for precision immunotherapy. Adv Wound Care (New Rochelle). 2026:21621918261417702.
- Deng CC, et al. Single-cell RNA-seq reveals immune cell heterogeneity and increased Th17 cells in human fibrotic skin diseases. Front Immunol. 2024;15:1522076.
- Wang Q, et al. Weighted gene co-expression network analysis and machine learning identified the lipid metabolism-related gene LGMN as a novel biomarker for keloid. Exp Dermatol. 2024;33(1):e14974.
- Zhang W, et al. New insights into keloid pathogenesis: biomarker potential for CDK7 and DDB2. Front Cell Dev Biol. 2025;13:1718189.
- Li W, et al. Altered arginine metabolism affects proliferation and radiosensitivity of keloids. Exp Dermatol. 2025;34(3):e70077.
- Jiang J, et al. Ambient fine particulate matter induces cardiac fibrosis through triggering ferroptosis by heme degradation induced-iron overload. Ecotoxicol Environ Saf. 2025;297:118227.
- Lin W, et al. Heme oxygenase-1 overexpression activates the IRF1/DRP1 signaling pathway to promote M2-type polarization of spinal cord microglia. Drug Dev Res. 2024;85(8):e70033.
- Knez J, Kovačič B, Goropevšek A. The role of regulatory T-cells in the development of endometriosis. Hum Reprod. 2024;39(7):1367-80.
- Voltarelli VA, et al. Heme: the lord of the iron ring. Antioxidants (Basel). 2023;12(5):1074.
- Wilks A, Egoshi R. Heme trafficking and the importance of handling nature's most versatile cofactor. Chem Rev. 2025;125(23):11358-78.
- Bertino F, et al. Dysregulation of FLVCR1a-dependent mitochondrial calcium handling in neural progenitors causes congenital hydrocephalus. Cell Rep Med. 2024;5(7):101647.
- Kumar A, et al. Iron regulates the quiescence of naive CD4 T cells by controlling mitochondria and cellular metabolism. Proc Natl Acad Sci U S A. 2024;121(17):e2318420121.
- Jiang H, et al. Gut microbiota dysbiosis in diabetic nephropathy: mechanisms and therapeutic targeting via the gut-kidney axis. Front Endocrinol (Lausanne). 2025;16:1661037.
- Charoentong P, et al. Pan-cancer immunogenomic analyses reveal genotype-immunophenotype relationships and predictors of response to checkpoint blockade. Cell Rep. 2017;18(1):248-62.
- Chen Y, et al. 5-ALA photodynamic metabolite-powered zero-waste ferroptosis amplifier for enhanced hypertrophic scar therapy. Nat Commun. 2025;16(1):8321.
- Li X, et al. Hypericin-mediated photodynamic therapy promotes apoptosis and inhibits fibrosis by inducing HMOX1-mediated ferroptosis in hypertrophic scar fibroblasts. J Photochem Photobiol B. 2025;273:113303.
- Chen Y, et al. Functional transdermal nanoethosomes enhance photodynamic therapy of hypertrophic scars via self-generating oxygen. ACS Appl Mater Interfaces. 2021;13(7):7955-65.
- Oh S, et al. Revealing the pathogenesis of keloids based on the status: active vs inactive. Exp Dermatol. 2024;33(5):e15088.
- Zhao S, et al. New anti-fibrotic strategies for keloids: insights from single-cell multi-omics. Cell Prolif. 2025;58(6):e13818.
- Yasujima T, et al. The role of FLVCR1 and FLVCR2 in choline transport in the Caco-2 intestinal epithelial cell model and rat small intestine. Biochim Biophys Acta Mol Basis Dis. 2025;1871(6):167883.
- Zhang M, Chen H, Qian H, Wang C. Characterization of the skin keloid microenvironment. Cell Commun Signal. 2023;21(1):207.
- Wang Y, et al. FoxC1 activates Notch3 signaling to promote the inflammatory phenotype of keloid fibroblasts and aggravates keloid. Exp Cell Res. 2025;444(2):114402.
- Zhang J, et al. ERG transcriptionally activates SFRP1 to promote apoptosis of keloid fibroblasts and inhibit epithelial-mesenchymal transition and fibrosis through the Wnt3a/β-catenin pathway. Arch Dermatol Res. 2025;317(1):467.
- Ramos-Tovar E, Muriel P. NLRP3 inflammasome in hepatic diseases: a pharmacological target. Biochem Pharmacol. 2023;217:115861.
- Brahadeeswaran S, et al. NLRP3: a new therapeutic target in alcoholic liver disease. Front Immunol. 2023;14:1215333.
- Xiao Y, et al. STING mediates hepatocyte pyroptosis in liver fibrosis by epigenetically activating the NLRP3 inflammasome. Redox Biol. 2023;62:102691.
- Paolucci T, et al. Quantum molecular resonance inhibits NLRP3 inflammasome/nitrosative stress and promotes M1 to M2 macrophage polarization: potential therapeutic effect in osteoarthritis model in vitro. Antioxidants (Basel). 2023;12(7):1358.
- Wei J, et al. FERM domain containing kindlin 1 knockdown attenuates inflammation induced by intracerebral hemorrhage in rats via NLR family pyrin domain containing 3/nuclear factor kappa B pathway. Exp Anim. 2023;72(3):324-35.
- Tao L, Zhou Y, Wu L, Liu J. Comprehensive analysis of sialylation-related genes and construct the prognostic model in sepsis. Sci Rep. 2024;14(1):18110.
- Sun Q, et al. Identification of hub genes and key pathways associated with sepsis progression using weighted gene co-expression network analysis and machine learning. Int J Mol Sci. 2025;26(9):4433.
- Chen JJ. HRI protein kinase in cytoplasmic heme sensing and mitochondrial stress response: relevance to hematological and mitochondrial diseases. J Biol Chem. 2025;301(5):108494.
- Chakrabarty Y, Yang Z, Chen H, Chan DC. The HRI branch of the integrated stress response selectively triggers mitophagy. Mol Cell. 2024;84(6):1090-100.e6.
- Bora P, et al. Drug repurposing screen identifies an HRI activating compound that promotes adaptive mitochondrial remodeling in MFN2-deficient cells. Proc Natl Acad Sci U S A. 2025;122(48):e2517552122.
- Zhang C, et al. CaMKII suppresses proteotoxicity by phosphorylating BAG3 in response to proteasomal dysfunction. EMBO Rep. 2024;25(10):4488-514.
- Chaabani H, et al. Trifloxystrobin induces oxidative stress-dependent activation of the OMA1-DELE1-HRI integrated stress response leading to apoptosis in human neuroblastoma cells. Environ Pollut. 2026;390:127562.
- Das R, et al. CMT2A-linked MFN2 mutation, T206I promotes mitochondrial hyperfusion and predisposes cells towards mitophagy. Mitochondrion. 2024;74:101825.
- De Simone G, et al. Heme scavenging and delivery: the role of human serum albumin. Biomolecules. 2023;13(3):575.
- Turilli-Ghisolfi ES, Lualdi M, Fasano M. Ligand-based regulation of dynamics and reactivity of hemoproteins. Biomolecules. 2023;13(4):683.
- Zhang P, et al. Risk factors and prediction models for cardiotoxicity induced by anthracyclines in malignant chemotherapy. Cancer Chemother Pharmacol. 2025;95(1):73.
- Petrillo S, et al. Endothelial cells require functional FLVCR1a during developmental and adult angiogenesis. Angiogenesis. 2023;26(3):365-84.
- Fiorito V, Tolosano E. Unearthing FLVCR1a: tracing the path to a vital cellular transporter. Cell Mol Life Sci. 2024;81(1):166.
- Manco M, et al. FLVCR1a controls cellular cholesterol levels through the regulation of heme biosynthesis and tricarboxylic acid cycle flux in endothelial cells. Biomolecules. 2024;14(2):149.
- Shi X, et al. Increased melanin induces aberrant keratinocyte-melanocyte-basal-fibroblast cell communication and fibrogenesis by inducing iron overload and ferroptosis resistance in keloids. Cell Commun Signal. 2025;23(1):141.
- Khunger N, Dash A. Impact of air pollution on skin pigmentation: mechanisms and protective strategies. Int J Dermatol. 2025;64(10):1788-801.
- Ahuja K, Raju S, Dahiya S, Motiani RK. ROS and calcium signaling are critical determinant of skin pigmentation. Cell Calcium. 2025;125:102987.
- Dutta A, Chakraborty S, Roy A, Mittal A, et al. Tissue fibrosis in cardiorenal syndrome: crosstalk between heart and kidneys. Nephrol Dial Transplant. 2025;40(7):1273-83.
- Noah AA, et al. Reversal of fibrosis and portal hypertension by empagliflozin treatment of CCl4-induced liver fibrosis: emphasis on gal-1/NRP-1/TGF-β and gal-1/NRP-1/VEGFR2 pathways. Eur J Pharmacol. 2023;959:176066.
- Murakami T, Shigeki S. Pharmacotherapy for keloids and hypertrophic scars. Int J Mol Sci. 2024;25(9):4674.
- Jin J, Zheng Z. Gut microbiota-derived metabolites in keloid and hypertrophic scarring. Front Microbiol. 2025;16:1644758.
- Aubert A, et al. Potential implications of granzyme B in keloids and hypertrophic scars through extracellular matrix remodeling and latent TGF-β activation. Front Immunol. 2024;15:1484462.