ارتبط ممارسة التمرين على جهاز المشي لمدة ثمانية أسابيع بتغيرات نسخية في القلب، والحاجز المعوي، وNlrp3، بالإضافة إلى تغير في ميكروبيوم الأمعاء، وتحديداً زيادة في Akkermansia muciniphila، لدى الفئران المصابة بالسكري.
مقالة بحثية
يرتبط تمرين جهاز المشي بتغيرات في حاجز الأمعاء وتعبير جين Nlrp3 القلبي في الفئران المصابة بمرض السكري
في هذه المقالة
ملخص
الملخص
بحثت هذه الدراسة في الارتباطات بين التمارين الرياضية والتعبير الجيني المرتبط بالحاجز المعوي والقلب Nlrp3 التعبير الجيني المرتبط بالجسيم الالتهابي (inflammasome) في نموذج فأر مصاب بداء السكري. تم تحفيز الخلل في التنظيم الأيضي في ذكور الفئران من سلالة C57BL/6J باستخدام نظام غذائي عالي الدهون مقترن بجرعة منخفضة من الستريبتوزوتوسين (streptozotocin)، تلتها 8 أسابيع من التمرين على جهاز المشي (5° منحدر، 12 متر/دقيقة، 20-50 دقيقة/يوم، 5 أيام/أسبوع). وبالمقارنة مع الفئران المصابة بالسكري والخاملة، أظهرت الفئران التي مارست التمارين انخفاضاً في مستويات سكر الدم الصيامي، ومقاومة الإنسولين، ومستويات دهون المصل، إلى جانب ارتفاع في مستويات القولون أوكلودين تعبير mRNA (التعبير النسبي: 0.38) ± 0.04 في الفئران المصابة بالسكري مقابل 0.79 ± 0.05 في الفئران التي مارست التمرين، P < 0.001)، وانخفاض في وظائف القلب Nlrp3, إنترلوكين-1β، عامل نخر الورم ألفا (TNF-α)α، Col1a1، و Tgfb1 تعبير mRNA، ونسبة أقل لـ Bax/Bcl-2 mRNA (3.06 ± 0.19 مقابل 1.48 ± 0.10, P < (0.001). وقد أظهر تحليل qPCR للبراز لستة من الأصناف المختارة أن التمرين ارتبط بزيادة الوفرة النسبية لـ *Akkermansia muciniphila* (0.31 ± 0.04 إلى 0.84 ± 0.07) و اللاكتوباسيلس (Lactobacillus) (0.48 ± 0.05 إلى 1.01 ± 0.07) وانخفضت Escherichia coli (3.84 ± 0.33 إلى 1.68 ± 0.13, P < 0.01). وفي الفئران التي خضعت للتمرين، *A. muciniphila* ارتبط الوفرة ارتباطاً سلبياً بـ cardiac Nlrp3 التعبير عن mRNA (R = −0.81, P = 0.0046). تشير هذه النتائج الارتباطية إلى وجود صلات بين ممارسة التمارين الرياضية، والتغيرات النسخية القلبية والمعوية، وأصناف مختارة من الميكروبات المعوية في الفئران المصابة بداء السكري، ولكنها لا تثبت وجود علاقات سببية. وتقتصر جميع النتائج الجزيئية على التغيرات في مستوى الحمض الريبوزي المرسال (mRNA)، ولا تثبت وظيفة الحاجز المعوي، أو تنشيط الجسيم الالتهابي، أو التليف العضلي القلبي، أو الموت الخلوي المبرمج، أو أي تأثيرات وظيفية أخرى أو تأثيرات على مستوى البروتين.
المقدمة
يعد داء السكري تهديداً صحياً عالمياً متزايداً، ولا تزال مضاعفات القلب السكرية حالات خطيرة ذات علاجات محددة محدودة1,2,3,4. يمكن للتدريب البدني أن يحسن وظائف القلب في النماذج الحيوانية المصابة بالسكري5,6، ولكن الآليات الكامنة، خاصة تلك التي تشمل ميكروبيوتا الأمعاء والحاجز المعوي، لا تزال غير مفهومة بشكل كامل.
تنظم ميكروبيوم الأمعاء عملية التمثيل الغذائي والمناعة لدى المضيف7. وفي حالة السكري، يمكن أن يؤدي اختلال التوازن الميكروبي المعوي وضعف سلامة الحاجز المعوي إلى زيادة انتقال عديد السكاريد الدهني (LPS)، وتعزيز الالتهاب بوساطة TLR4، وتفاقم إصابة عضلة القلب8,9. وقد يساهم هذا العبء الالتهابي المشتق من الأمعاء في تطور مضاعفات السكري، بما في ذلك خلل وظائف القلب. وقد تنخفض البكتيريا النافعة مثل Akkermansia و Faecalibacterium، بينما قد تزداد بكتيريا مثل E. coli10,11. ويمكن أن تساهم هذه التغيرات الميكروبية في حدوث التهاب معوي موضعي وتسمم داخلي جهازي، مما قد يؤثر على الأعضاء البعيدة، بما في ذلك القلب. ويعد الجسيم الالتهابي NLRP3 وسيطاً هاماً للالتهاب القلبي في اعتلالات القلب السكرية، ويمكن تعديل تنشيطه بواسطة نواتج التمثيل الغذائي للميكروبات المعوية12,13. ولبعض المنتجات الميكروبية، خاصة الأحماض الدهنية قصيرة السلسلة و LPS، تأثيرات متضادة على تحضير وتجميع NLRP3، مما يشير إلى وجود ارتباط محتمل بين البيئة الميكروبية المعوية والحالة الالتهابية لعضلة القلب.
يمكن للتمارين الرياضية أن تغير ميكروبيوتا الأمعاء وتحسن وظيفة الحاجز المعوي14,15، ولكن لا تزال الروابط بين التمارين الرياضية، والتعبير الجيني المرتبط بالحاجز المعوي، والتعبير الجيني المرتبط بالجسيم الالتهابي NLRP3 في القلب في النماذج المصابة بالسكري غير مفهومة بشكل كامل. تعمل الظهارة المعوية كواجهة بين الميكروبات اللمعية والدورة الدموية الجهازية، وبالتالي قد تساهم في الروابط بين التغيرات في ميكروبيوتا الأمعاء والاستجابات الالتهابية القلبية. ومع ذلك، لا يزال هناك نقص في الأدلة التجريبية المباشرة التي تثبت وجود علاقة سببية بين التغيرات الناجمة عن التمارين الرياضية في الحاجز المعوي، وتنشيط الجسيم الالتهابي NLRP3، وحماية القلب في النماذج المصابة بالسكري.
وبناءً على ذلك، كانت الفرضية هي أن التمرين على جهاز المشي سيكون مرتبطاً بتغيرات في النسخ الجيني القلبي، وتغير في مجموعات مختارة من الميكروبات المعوية، والحفاظ على التعبير الجيني المرتبط بالحاجز المعوي، وانخفاض التعبير الجيني المرتبط بـ NLRP3 inflammasome القلبي في الفئران المصابة بالسكري. تم إنشاء نموذج للفئران المصابة بالسكري باستخدام نظام غذائي عالي الدهون مقترناً بجرعة منخفضة من streptozotocin، يليه تدخل بالتمرين على جهاز المشي لمدة 8 أسابيع. شملت التقييمات المعاملات الأيضية، والتعبير عن mRNA لبروتين Occludin في القولون، والتعبير الجيني المرتبط بـ NLRP3 inflammasome القلبي، وعلامات التعبير الجيني الالتهابية والتلييفية والمؤدية لموت الخلايا المبرمج. كما تم قياس مجموعات مختارة من الميكروبات المعوية لتقييم التغيرات المرتبطة بالتمرين في ميكروبيوتا الأمعاء. واستُخدمت تحليلات الارتباط لفحص الروابط بين مجموعات مختارة من الميكروبات المعوية، والتعبير الجيني المرتبط بالحاجز المعوي، وعلامات النسخ الجيني القلبي. وقد صُممت هذه التحليلات لتحديد الارتباطات بدلاً من إثبات آلية سببية تربط بين الحاجز المعوي و NLRP3.
البروتوكول
أُجريت جميع الإجراءات الحيوانية في مرفق حيواني معتمد من قبل منظمة دولية لاعتماد الرعاية الصحية للحيوانات المختبرية. تمت مراجعة البروتوكول والموافقة عليه من قبل لجنة الرعاية والاستخدام المؤسسي للحيوانات (IACUC؛ رقم الموافقة: VS212500103) التابعة للمرفق. أُجريت التجارب في مرفق خارجي معتمد نظرًا لافتقار المؤسسة الأم إلى مرفق حيواني مرخص لهذا النموذج المحدد.
إنشاء نموذج الفأر المصاب بمرض السكري
تم تأقلم فئران ذكور من سلالة C57BL/6J (بعمر 8 أسابيع، من الدرجة الخالية من مسببات الأمراض النوعية، وبوزن جسم يتراوح بين 20–22 g) لمدة أسبوع واحد تحت ظروف مضبوطة (22 ± 2 °C، ورطوبة نسبية 50 ± 10%، ودورة إضاءة/إظلام مدتها 12 h) مع إتاحة الوصول إلى العلف القياسي والماء بشكل حر.
بعد فترة التأقلم، تم توزيع الفئران عشوائياً باستخدام جدول أرقام عشوائية إلى مجموعة ضابطة طبيعية (Control، العدد = 10) أو مجموعة تحفيز داء السكري. وقد أُجريت الإجراءات التجريبية وقياسات النتائج بمعرفة باحثين لم يكونوا على دراية بتوزيع المجموعات. وُضعت الحيوانات بواقع أربعة في كل قفص، في أقفاص قياسية من البولي كربونات مع فراش مُحسّن تحت ظروف خالية من مسببات الأمراض المحددة. تم استخدام ذكور الفئران فقط لتقليل التباين المحتمل المرتبط بدورات الشبق، ولأن نموذج النظام الغذائي عالي الدهون/STZ أنتج أنماطاً ظاهرية أيضية أكثر اتساقاً في الذكور.
تمت تغذية الفئران التي خضعت لتحفيز داء السكري بنظام غذائي عالي الدهون (60% من السعرات الحرارية من الدهون) لمدة 4 أسابيع، تلتها حقن بريتونية من الستريبتوزوتوسين (STZ؛ 30 mg/kg من وزن الجسم) لمدة 5 أيام متتالية. تم إذابة STZ حديثاً في محلول منظم من السترات بتركيز 0.1 mol/L (pH 4.5)، مع حمايته من الضوء، وإعطائه خلال 15 min من التحضير. وتلقت فئران المجموعة الضابطة أحجاماً مكافئة من محلول السترات المنظم. وبعد أسبوع واحد من الحقنة الأخيرة، تم قياس مستوى جلوكوز الدم الصائم (FBG) من دم طرف الذيل بعد صيام لمدة 6 h. واعتُبرت الفئران التي بلغ مستوى FBG لديها ≥ 11.1 mmol/L مصابة بداء السكري. وتم الإبقاء على هذه الفئران على النظام الغذائي عالي الدهون لمدة 4 أسابيع إضافية للسماح بتطور التغيرات المرتبطة بداء السكري في التعبير الجيني.
خضع ما مجموعه 35 فأراً لتحفيز النموذج، استوفى منهم 28 فأراً معيار مرض السكري. تمت مراقبة وزن الجسم ومدخول الطعام أسبوعياً، ولكن لم يتم استخدامهما كمعايير للاستبعاد. لم تمت أي من الحيوانات ولم يتم استبعاد أي منها خلال مرحلتي النمذجة أو التدخل. قُسمت الفئران التي تمت نمذجتها بنجاح عشوائياً إلى مجموعة مصابة بالسكري (DM, n = 10) ومجموعة تدخل بالتمارين الرياضية (DM+Ex, n = 10). وكان حجم العينة النهائي n = 10 لكل مجموعة في جميع التحليلات، مع اعتبار كل فأر كـوحدة تجريبية.
تدخل التمرين على جهاز المشي
قامت الفئران في مجموعة DM+Ex بتمارين جهاز المشي عند ميل بمقدار 5° وبسرعة 12 m/min، وذلك لمدة 5 أيام/أسبوع على مدار 8 أسابيع. أُجريت جميع جلسات التمرين بين الساعة 9:00 و 11:00 صباحاً. وقبل التدخل، تم تعويد الفئران على الجري على جهاز المشي لمدة 3 أيام بسرعة 6 m/min ولمدة 5 min/day عند ميل بمقدار 0°. تضمنت كل جلسة تمرين مرحلة إحماء لمدة 5 min بسرعة 6 m/min ومرحلة تهدئة لمدة 5 min بسرعة 6 m/min. استُخدم التحفيز الخفيف لتشجيع الفئران على الجري، ولم يُستخدم التحفيز الكهربائي.
كانت مدد الجري اليومية 20 min في الأسبوع 1، و25 min في الأسبوع 2، و30 min في الأسبوع 3، و35 min في الأسبوع 4، و40 min في الأسبوع 5، و45 min في الأسبوع 6، و50 min في الأسبوعين 7–8. ووضعت فئران المجموعة الضابطة وفئران DM على أجهزة سير كهربائي ثابتة لمدد زمنية مماثلة للتحكم في تأثيرات المناولة والتعرض البيئي. وكان معيار الاستبعاد المحدد مسبقاً هو عدم إكمال أكثر من 80% من جلسات التمرين المقررة. ولم تستوفِ أي من الحيوانات هذا المعيار؛ حيث أكملت جميع الحيوانات جلسات التمرين المقررة، ولم تُلاحظ أي آثار عكسية.
جمع العينات
بعد مرور اثنتي عشرة ساعة على جلسة التمرين النهائية، صِيمت الفئران لمدة 6 h وخُدّرت عن طريق استنشاق الإيزوفلوران (3% للحث و1.5–2% للمحافظة في 100% O₂ بمعدل 1 L/min). جُمِع حوالي 500 µL من الدم من الضفيرة الوريدية خلف الحجاج، وتُرك ليتجلط في درجة حرارة الغرفة لمدة 30 min، ثم طُرِد مركزياً عند 3,000 × g لمدة 15 min عند 4 °C. خُزّن المصل الناتج عند −80 °C.
تم بعد ذلك قتل الفئران عن طريق الخلع العنقي تحت تخدير عميق. استُؤصلت القلوب بسرعة وغُسلت بمحلول ملحي منظم بالفوسفات (PBS) بارد ومثلج. تم عزل أنسجة البطين الأيسر؛ حيث جُمّد جزء منها بالتجميد المفاجئ في النيتروجين السائل وخُزن عند −80 °C لاستخلاص RNA، بينما ثُبّتت الأنسجة المتبقية في 4% بارافورمالدهيد. جُمِع حوالي 1 cm من أنسجة القولون القاصية، وغُسلت بمحلول PBS، ثم جُمّدت بالتجميد المفاجئ وخُزنت عند −80 °C. جُمِعت عينات براز طازجة مباشرة من المستقيم بين الساعة 9:00 و10:00 صباحاً لتقليل تلوث الأقفاص، ونُقلت إلى أنابيب معقمة، وخُزنت عند −80 °C خلال 15 min من وقت الجمع.
قياسات الكيمياء الحيوية للمصل
تم قياس FBG باستخدام نظام قياس جلوكوز الدم. كما تم تحديد مستوى إنسولين المصل بواسطة مقايسة الممتز المناعي المرتبط بالإنزيم، بينما تم قياس الكوليسترول الكلي والدهون الثلاثية باستخدام محلل كيميائي حيوي آلي. وحُسبت مقاومة الإنسولين باستخدام نموذج التقييم الاستتبابي: HOMA-IR = FBG (mmol/L) × insulin (mIU/L)/22.5.
استخلاص الحمض النووي الريبوزي (RNA) وتفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي من أنسجة عضلة القلب
تم تجانس ما يقرب من 30 mg من أنسجة البطين الأيسر في كاشف لاستخلاص RNA يعتمد على الفينول-جوانيدينيوم، واستُخلص الـ RNA الكلي وفقاً لبروتوكول الكاشف. تم تقييم تركيز ونقاوة الـ RNA باستخدام القياس الطيفي، حيث اعتُبرت نسبة A260/A280 التي تتراوح بين 1.8–2.0 مقبولة. ثم تم تحويل الـ RNA الكلي (1 µg) عن طريق النسخ العكسي إلى DNA متمم (cDNA).
أُجري تفاعل البوليميراز المتسلسل الكمي (qPCR) في خليط تفاعل بحجم 20 µL يحتوي على مزيج رئيسي (master mix) لـ qPCR يرتبط بالحمض النووي DNA ويرتبط بصبغة فلورية، و0.4 µmol/L من كل من البادئات الأمامية والعكسية، و2 µL من قالب cDNA. كانت ظروف التضخيم 95 °C لمدة 30 s، تليها 40 دورة من 95 °C لمدة 5 s و60 °C لمدة 34 s. وأُجري تحليل منحنى الانصهار (Melt-curve analysis) في نطاق يتراوح بين 65–95 °C للتحقق من خصوصية التضخيم. وقد نُفذت جميع التفاعلات في مكررات ثنائية، مع تضمين ضوابط خالية من القالب (no-template) وضوابط خالية من النسخ العكسي (no-reverse-transcription). وتراوحت كفاءات التضخيم لجميع أزواج البادئات بين 90–105%. وترد البادئات الخاصة بـ Tnfa وIl1b وTgfb1 وCol1a1 وNlrp3 وGapdh في الجدول 1. حُسب التعبير الجيني النسبي باستخدام طريقة 2−ΔΔCt وعُبِّر عنه كـ "تغير مضاعف" (fold change) بالنسبة لمجموعة الضبط (Control group).
استخلاص الحمض النووي من الميكروبيوتا المعوية والتقدير الكمي بواسطة تفاعل البوليميراز المتسلسل الكمي (qPCR)
تم استخلاص الحمض النووي الميكروبي الكلي من عينات البراز باستخدام بروتوكول استخلاص الحمض النووي من البراز. وتم تحديد الوفرة النسبية لستة من التصنيفات البكتيرية المختارة—Faecalibacterium prausnitzii، وAkkermansia muciniphila، وجنس Lactobacillus، وجنس Bifidobacterium، وEscherichia coli، وجنس Desulfovibrio—عن طريق تفاعل البوليميراز المتسلسل الكمي (qPCR) باستخدام بادئات خاصة بكل تصنيف كما هي مدرجة في الجدول 1. واستُخدمت بادئات 16S rRNA البكتيرية العامة كمرجع للوفرة البكتيرية الكلية.
تم حساب الوفرة النسبية باستخدام طريقة 2−ΔΔCt مع اعتبار إجمالي 16S rRNA البكتيري كمرجع، وتمت معايرتها بالنسبة إلى مجموعة التحكم. تم إنشاء منحنيات قياسية لكل هدف باستخدام تخفيفات متسلسلة من DNA البلازميدي بتركيزات معروفة للتحقق من كفاءة التضخيم. أُجريت جميع التفاعلات في مكررات مع تحليل منحنى الانصهار. ونظراً لاختلاف عدد نسخ جين 16S rRNA بين الأصناف البكتيرية، فقد تم تقديم النتائج على شكل وفرة نسبية 2−ΔΔCt بدلاً من أعداد النسخ المطلقة.
تقييم تعبير بروتين Occludin في القولون
تمت معالجة ما يقرب من 30 mg من أنسجة القولون لاستخلاص الحمض النووي الريبي (RNA) الكلي وتخليق الحمض النووي المتمم (cDNA) كما هو موضح أعلاه. تم قياس تعبير mRNA لـ Occludin بواسطة qPCR باستخدام البادئات التالية: الأمامية، 5′-GTCGAATGTCTTTGCTGGTGGT-3′؛ والعكسية، 5′-GCAGCAGCCATGTACTCTTCAC-3′. استُخدم Gapdh كمرجع داخلي، وحُسب التعبير النسبي باستخدام طريقة 2−ΔΔCt.
التحليل الإحصائي
عُرِضت البيانات في شكل المتوسط ± الانحراف المعياري (SD). وتم تقييم التوزيع الطبيعي باستخدام اختبار Shapiro-Wilk، كما تم تقييم تجانس التباين باستخدام اختبار Levene. أما البيانات الخاصة بالمقارنات بين المجموعات والتي استوفت الافتراضات البارامترية، فقد حُللت باستخدام تحليل التباين أحادي الاتجاه (ANOVA)، يليه اختبار Tukey للفروق الجوهرية الصادقة (HSD) لإجراء المقارنات الزوجية البعدية. كما أُجريت المقارنات بين مجموعتين باستخدام اختبار Student t غير المقترن وذي الذيلين.
استُخدم معامل ارتباط سبيرمان لرتب المتغيرات لتقييم الارتباطات بين المتغيرات. وبالنسبة للخريطة الحرارية للارتباط، حُسبت ارتباطات سبيرمان الجزئية مع ضبط تأثير المجموعة التجريبية. P تم تعديل القيم لإجراء المقارنات المتعددة باستخدام إجراء بنجاميني-هوكبيرج لمعدل الاكتشاف الخاطئ (FDR)، وتم [اعتبار] القيمة المعدلة وفقاً لمعدل الاكتشاف الخاطئ... P < اعتُبرت القيمة 0.05 دالة إحصائياً. وأحجام التأثير (كوهين d) ف لتحليل التباين (ANOVA) و يرجى تقديم النص الذي ترغب في ترجمته. (بالنسبة للارتباطات) وتم تقديم فواصل الثقة بنسبة 95% لفروق المتوسطات الرئيسية حيثما كان ذلك مناسباً. وأُجريت جميع التحليلات الإحصائية باستخدام برنامج للحوسبة الإحصائية (الإصدار 4.2.0).
النتائج
ارتُبط التمرين على جهاز المشي بتحسن في الاضطرابات الأيضية لدى الفئران المصابة بالسكري
مقارنةً بالمجموعة الضابطة، أظهرت الفئران المصابة بالسكري ارتفاعًا كبيرًا في مستوى الجلوكوز الصيامي في الدم (18.23 ± 0.61 مقابل 6.03 ± 0.21 مليمول/لتر، P < 0.001)، الأنسولين في المصل (16.30 ± 1.04 مقابل 8.23 ± 0.38 مللي وحدة دولية/لتر، P < 0.001)، مؤشر مقاومة الإنسولين (HOMA-IR) (13.19 ± 1.18 مقابل 2.21 ± 0.17, P < 0.001)، الكوليسترول الكلي (4.62 ± 0.23 مقابل 2.01 ± 0.09 مليمول/لتر، P < 0.001)، والدهون الثلاثية (2.12 ± 0.15 مقابل 0.80 ± 0.08 مليمول/لتر، P < 0.001). بعد التدخل الممتد 8 أسابيع والقائم على التمرين على جهاز المشي، انخفضت هذه المعايير إلى 12.03 ± 0.63 مليمول/لتر، 10.61 ± 0.71 مللي وحدة دولية/لتر، 5.69 ± 0.67, 3.09 ± 0.24 مليمول/لتر، و1.20 ± 0.14 مليمول/لتر، على التوالي، مقارنةً بالفئران المصابة بالسكري (P < 0.01 أو P < 0.001)؛ ومع ذلك، بقيت معظم القيم أعلى من تلك الموجودة في مجموعة التحكم (الشكل 1A–هـ). أظهر تحليل التباين الأحادي اتجاه تأثيرات مجموعة ذات دلالة إحصائية لجميع المعلمات (جميع قيم F(2,27) > 25.0, P < 0.001).
كانت التدريبات البدنية مرتبطة بزيادة التعبير الجيني لرسول الحمض النووي (mRNA) للبروتين المغلق (Occludin) في القولون، وانخفاض التعبير الجيني المرتبط بالجهاز الالتهابي (inflammasome) في القلب
في الفئران المصابة بالسكري، القولون أوكليدين كانت التعبير عن mRNA أقل بنسبة 62% تقريبًا مقارنةً بالمجموعة الضابطة (0.38 ± 0.04 مقابل 1.00 ± 0.06, P < 0.001). في الوقت نفسه، القلبية Nlrp3, Il1b، و Tnfa ازداد التعبير عن mRNA إلى 5.6 ضعف، و6.5 ضعف، و5.1 ضعف من قيم المجموعة الضابطة، على التوالي (جميعها P < 0.001). بعد التدخل بالتمرين، أوكلودين ارتفع التعبير عن mRNA إلى 0.79 ± 0.05 (P < 0.001 مقابل الفئران المصابة بالسكري)، في حين أن Nlrp3, Il1b، و Tnfa انخفض التعبير عن mRNA إلى 2.30 ± 0.21, 2.66 ± 0.25، و2.14 ± 0.17 على التوالي (جميع P < 0.001 مقابل الفئران المصابة بالسكري؛ الشكل 2A–د).
كانت ممارسة التمرين مصحوبة بانخفاض التعبير الجيني المرتبط بالتليف القلبي والانتحال الخلوي
أظهرت المجموعة السكريّة زيادة في التعبير القلبي للجينات المرتبطة بالتليف Col1a1 (4.46 ± 0.29 مرة، P < 0.001) و Tgfb1 (4.17 ± 0.24 مرة، P < 0.001)، إلى جانب ارتفاع أكبر بَاكْس/بِي.كَل-2 نسبة الحمض النووي المرسال (3.06 ± 0.19, P < 0.001) مقارنةً بمجموعة التحكم. بعد تدريب التمرين، Col1a1 و Tgfb1 انخفض التعبير عن mRNA إلى 2.02 ± 0.16 و 1.92 ± 0.16، على التوالي (كلاهما P < 0.001 مقابل الفئران المصابة بالسكري)، و بَاكْس/بِيْ-سي-إل-2 انخفضت نسبة mRNA إلى 1.48 ± 0.10 (P < 0.001 مقابل الفئران المصابة بالسكري؛ الشكل 3A–ج).
ارتُبطت الممارسة الرياضية بتغيرات في بعض الطوائف الميكروبية المعوية المختارة لدى الفئران المصابة بالسكري
مقارنةً بمجموعة التحكم، أظهرت الفئران المصابة بالسكري وفرة نسبية أقل بشكل كبير لأربعة طوائف بكتيرية مختارة: F. prausnitzii (0.25 ± 0.03 مقابل 1.01 ± 0.07), A. muciniphila (0.31 ± 0.04 مقابل 1.00 ± 0.06), لاكتوباسيلس (0.48 ± 0.05 مقابل 0.99 ± 0.04)، و بكتيريا بيفيدوباكتيريوم (0.56 ± 0.06 مقابل 1.00 ± 0.06؛ جميعها P < 0.001). على النقيض، فإن الوفرة النسبية لـ إيشيريشيا كولاي (3.84 ± 0.33 مقابل 0.99 ± 0.08) و ديسولفوفيبريو (3.07 ± 0.26 مقابل 0.99 ± 0.07) كانت أعلى بشكل كبير (كلاهما P < 0.001). كانت التدخلات التمرينية مرتبطة بزيادة كبيرة في الترددات النسبية لـ F. prausnitzii, A. muciniphila, لاكتوباسيلس، و بكتيريا بيفيدوباكتريوم (P < 0.01 أو P < 0.001)، مع A. muciniphila تصل إلى 0.84 ± 0.07. في الوقت نفسه، التَّرَدُّدات النسبية لـ إيشيريشيا كولاي و ديسولفوفيبريو انخفض إلى 1.68 ± 0.13 و 1.52 ± 0.08، على التوالي (كلاهما P < 0.001 مقابل الفئران السكريّة؛ الشكل 4A–ف).
تمت مقارنة التغيرات الميكروبية المختارة مع التعبير الجيني في القلب والقولون
سبيرمان'أُجري تحليل ارتباط لتقدير العلاقات بين الوفرة النسبية للرتب الميكروبية المختارة وعلامات التعبير الجيني في الأنسجة القلبية والقولونية (الشكل 5A). الوفرة النسبية لـ A. muciniphila كان مرتبطًا سلبيًا بالقلب Nlrp3 mRNA (R = −0.81, P = 0.0046) و Tnfa mRNA (R = −0.80, P = 0.0054). الوفرة النسبية لـ بكتيريا الإشريكية القولونية ارتبطت بشكل إيجابي مع القولون أوكليدين التعبير عن mRNAR = 0.66, P = 0.036; الشكل 5B–د) أظهرت هذه النتائج وجود ارتباطات بين بعض الطوائف الميكروبية المعوية المختارة وعلامات النسخ الجيني في القلب والقولون، ولكنها لم تُثبت علاقات سببية.
توافر البيانات:
تتوفر مجموعات البيانات التي تم إنشاؤها و/أو تحليلها خلال الدراسة الحالية من المؤلف المسؤول upon طلب معقول.
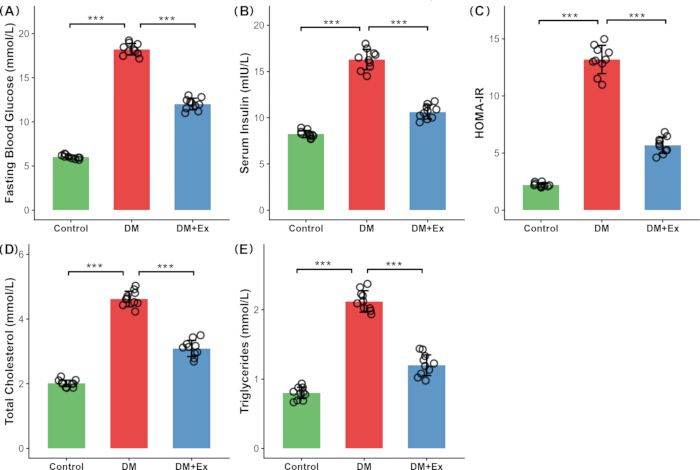
الشكل 1: تأثيرات التمرين على جهاز المشي على المعلمات الأيضية في الفئران المصابة بالسكري (A) الجلوكوز في الدم أثناء الصيام. (Bالأنسولين في المصل.ج) مؤشر مقاومة الإنسولين حسب نموذج التوازن (HOMA-IRدالكوليسترول الكليهـالدهون الثلاثية في مجموعات السيطرة، مرض السكري، ومرض السكري+تمرين. تُعرض البيانات كمتوسط ± SD (ن = 10 لكل مجموعة)، مع عرض النقاط الفردية للبيانات مطبقة على كل شريط. أُجريت المقارنات بين المجموعات باستخدام تحليل التباين الأحادي الاتجاه (one-way ANOVA) يليه اختبار تيكي'اختبار ما بعد المُعامَلة. *P < 0.05, **P < 0.01, ***P < 0.001؛ ns = غير دال. الاختصارات: DM = نموذج السكري؛ Ex = تمارين رياضية؛ HOMA-IR = تقييم النموذج الثابت لمقاومة الإنسولين؛ SD = الانحراف المعياري يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
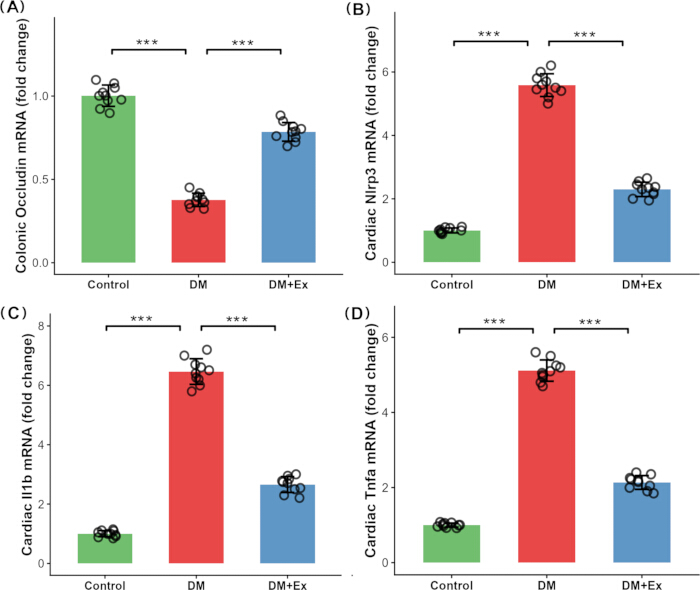
الشكل 2: تأثيرات التمرين على جهاز المشي في التعبير الجيني المرتبط بالحاجز المعوي والجهاز الالتهابي المرتبط بالقلب لدى الفئران المصابة بالسكري. (A) النسبية للقولون أوكليدين التعبير عن mRNA. (B) القلب النسبي Nlrp3 التعبير عن الحمض النووي الريبي المرسال. (ج) القلب النسبي Il1b التعبير عن mRNA.د) القلب النسبي Tnfa التعبير عن الحمض النووي الرسول. تم تسوية التعبير الجيني بالنسبة إلى Gapdh وتعبر عنها كتغيير مضاعف بالنسبة إلى مجموعة التحكم. تُعرض البيانات كمتوسط ± SD (ن = 10 لكل مجموعة). *P < 0.05, **P < 0.01, ***P < 0.001. الاختصارات: IL-1β = إنترلوكين-1β؛ TNF-α عامل نخر الورم-α؛ SD = الانحراف المعياري. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
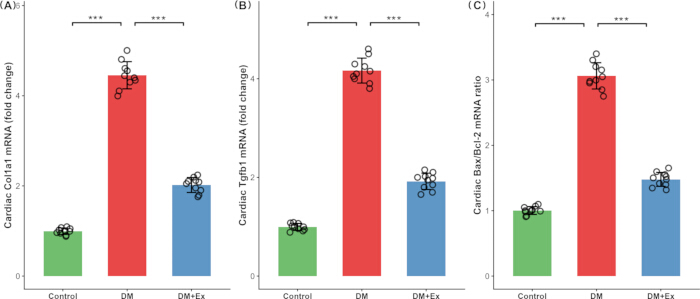
الشكل 3: تأثيرات التمرين على جهاز المشي على التعبير الجيني المرتبط بالتليف القلبي والانتحار الخلوي في الفئران المصابة بالسكري. (A) القلب النسبي Col1a1 التعبير عن الحمض النووي الريبي المرسال. (B) القلب النسبي Tgfb1 التعبير عن الحمض النووي الريبي المرسال. (ج) بَاكس/بِي-سي-إل-2 نسبة mRNA. تم تسوية التعبير الجيني بالنسبة إلى جَابده وتعبر عنها كتغيير مضاعف بالنسبة إلى مجموعة التحكم. الـ بَاكْس/بِيْ-سي-إل-2 تم حساب النسبة من قيم التعبير النسبي لـmRNA. تُعرض البيانات كمتوسط ± SD (ن = 10 لكل مجموعة)، مع عرض النقاط البيانية الفردية مطبقة على كل شريط. *P < 0.05, **P < 0.01, ***P < ٠٫٠٠١. الاختصارات: Col1a1 = كولاجين النوع الأول ألفا ١؛ Tgfb1 = عامل النمو المحول-بβ1؛ Bax = بروتين X المرتبط بـ BCL2؛ Bcl2 = ورم اللمفية الخلية البائية 2؛ SD = الانحراف المعياري يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
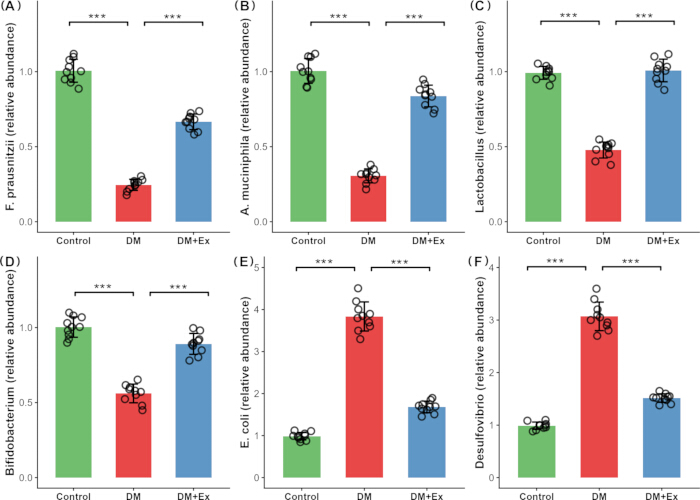
الشكل 4: تأثيرات تمارين الجري على الأسطح النسبية لفئات ميكروبية معوية مختارة في فئران السكري (A) فايسيالباتريوم براسنيتزيي. (B) أكرمانسيا موسيينيفيليا. (ج) لاكتوباسيلس. (د) بكتيريا بيفيدوباكتريوم. (هـ) إيشيريشيا كولاي. (ف) ديسولفوفيبريو. تم تحديد الوفرة النسبية باستخدام تفاعل البوليميراز المتسلسل الكمي (qPCR) من خلال أهداف محددة للأنواع ضمن جين 16S rRNA مقارنةً بإجمالي جين 16S rRNA للبكتيريا، ثم تم تسوية القيم بالنسبة إلى مجموعة التحكم. تُعرض البيانات كمتوسط ± الانحراف المعياري (SD)ن = 10 لكل مجموعة). *P < 0.05, **P < 0.01, ***P < 0.001. الاختصار: SD = الانحراف المعياري. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
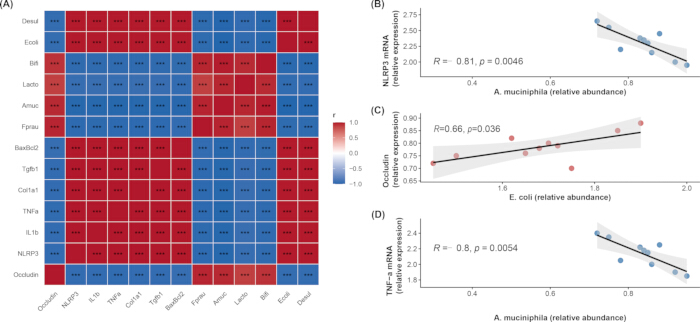
الشكل 5تحليل الارتباط بين بعض الطوائف الميكروبية المعوية المختارة ومعلمات التعبير الجيني في القلب والقولون (Aخريطة حرارية توضح معامل ارتباط سبيرمان'معاملات الارتباط بين الطوائف البكتيرية المختارة والقولون أوكليدين mRNA، قلبية Nlrp3, Il1b، و Tnfa الرنا المرسال، Col1a1 و Tgfb1 الرنا المرسال، والـ بَاكس/بِي-سي-إل-2 نسبة الحمض النووي المرسال. تم حساب الارتباطات باستخدام البيانات من المجموعات الثلاث (ن = 30) كمعامل ارتباط سبيرمان الجزئي مع التحكم في المجموعة التجريبية. يتراوح مقياس اللون من الأزرق للارتباطات السلبية إلى الأحمر للارتباطات الموجبة. تشير النجميات داخل الخريطة الحرارية إلى الدلالة الإحصائية بعد تصحيح FDR (*P < 0.05, **P < 0.01, ***P < 0.001). (Bالارتباط بين A. muciniphila الوفرة النسبية والقلب Nlrp3 التعبير عن mRNA داخل المجموعة DM+Ex. (ج) الارتباط بين بكتيريا الإشريكية القولونية الوفرة النسبية والقولونية أوكليدين التعبير عن mRNA داخل المجموعة DM+Ex. (دالارتباط بين A. muciniphila الوفرة النسبية والقلب Tnfa التعبير عن mRNA داخل المجموعة DM+Ex. يمثل كل نقطة فأرًا فرديًا. تُظهر الخطوط الانحدارية الخطي وفترات الثقة 95% لأغراض التصوير. الاختصارات: DM = نموذج السكري؛ Ex = التمرين؛ FDR = معدل اكتشاف الخطأ يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
| جين/ميكروبي | البادئ الأمامي | المرنا العكسي |
| Tnfa | سي سي سي تي سي إيه سيه إيه سي تي سي إيه جي إيه تي سي إيه تي سي تي تي سي تي تي | GCTACGACGTGGGCTACAG |
| Il1b | جـ-جـ-أ-ع-أ-ثـ-جـ-تـ-تـ-ع-جـ-جـ-أ-ع-تـ-جـ-أ-أ-ثـ-تـ-ع-جـ-أ-ع-تـ | ATCTTTTGGGGTCCGTCAACT |
| Tgfb1 | CTCCCGTGGCTTCTAGTGC | GCCTTAGTTTGGACAGGATCTG |
| Col1a1 | GCTCCTCTTAGGGGCCACT | CCACGTCTCACCATTGGGG |
| بَاكْس | AGACAGGGGCCTTTTTGCTAC | AATTCGCCGGAGACACTCG |
| Bcl2 | GCTACCGTCGTGACTTCGC | CCCCACCGAACTCAAAGAAGG |
| Nlrp3 | GTGAGCCCACACCACAGTTC | GACGTTCACCTCGCAGATGA |
| جَابِدْه | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| البكتيريا الكلية (16S rRNA) | ACTCCTACGGGAGGCAGCAG | ATTACCGCGGCTGCTGG |
| F. prausnitzii | GGAGGAAGAAGGTCTTCGG | AATTCCGCCTACCTCTGCACT |
| A. muciniphila | CAGCACGTGAAGGTGGGGAC | CCTTGCGGTTGGCTTCAGAT |
| لاكتوباسيلس | AGCAGTAGGGAATCTTCCA | ATTYCACCGCTACACATG |
| بكتيريا بيفيدوباكتريوم | TCGCGTCCGGTGTGAAAG | CCACATCCAGCATCCAC |
| إيشيريشيا كولاي | AGGCCTTCGGGTTGTAAAGT | GTTAGCCGGTGCTTCTTCTG |
| ديسولفوفيبريّو | CCGTAGATATCTGGAGGAACATCAG | ACATCTAGCATCCATCGTTTACAGC |
الجدول 1: تسلسلات البدائل المستخدمة في تفاعل البلمرة المتسلسل الكمي الفعلي في الزمن الحقيقي.
المناقشة
في الدراسة الحالية، تم استخدام نموذج فأر مصاب بالسكري تم تحفيزه بواسطة نظام غذائي عالي الدهون مقترن بجرعة منخفضة من STZ لتقييم التغيرات الأيضية والمعوية والقلبية والميكروبية المرتبطة بالتمرين. وقد ارتبط ممارسة التمارين على جهاز المشي لمدة ثمانية أسابيع بتحسن المعايير الأيضية، وارتفاع تعبير mRNA لبروتين Occludin في القولون، وانخفاض تعبير الجينات المرتبطة بالجسيم الالتهابي Nlrp3 في القلب، وانخفاض تعبير الجينات المرتبطة بالالتهاب والتليف والموت الخلوي المبرمج في عضلة القلب. كما ارتبط التمرين بتغيرات في الوفرة النسبية لبعض المجموعات الميكروبية المعوية المختارة. وبشكل جماعي، تشير هذه النتائج إلى أن التغيرات النسخية القلبية المرتبطة بالتمرين قد تكون مرتبطة بتغيرات في تعبير الجينات المرتبطة بالحاجز المعوي وبعض المجموعات الميكروبية المعوية المختارة، على الرغم من عدم إثبات العلاقة السببية.
كما هو متوقع في نموذج مرض السكري، ظهرت على الفئران اضطرابات أيضية واضحة، شملت فرط سكر الدم، وفرط أنسولين الدم، ومقاومة الأنسولين، واختلال دهون الدم، وهو ما يتوافق مع النموذج المرضي الراسخ16,17. وقد ارتبط نظام التمرين لمدة 8 أسابيع بانخفاضات بلغت حوالي 34% في مستوى جلوكوز الصيام و57% في مؤشر HOMA-IR، مما يشير إلى تحسن جزئي في مقاومة الأنسولين. أما على مستوى عضلة القلب، فقد ارتبط التمرين بانخفاضات تتراوح بين 40% و60% في تعبير مؤشرات mRNA المحفزة للالتهاب (Tnfa, Il1b)، والمحفزة للتليف (Tgfb1, Col1a1)، والمتعلقة بموت الخلايا المبرمج (Bax/Bcl2)، وهو ما يتفق مع الدراسات السابقة التي ربطت التمارين الهوائية بتنشيط AMPK وتثبيط NF-κB18,19. ومع ذلك، لم تعد أي من هذه المعايير إلى مستويات مجموعة Control، مما يشير إلى أن التدخل لمدة 8 أسابيع لم يكن كافيًا لتطبيع النمط الظاهري النسخي المرتبط بمرض السكري المستقر، وهو ما قد يكون مرتبطًا بتأثيرات ذاكرة سكر الدم المستمرة20.
كان تعبير mRNA لبروتين Occludin في القولون أقل بنسبة 62% تقريباً في الفئران المصابة بالسكري، مما يشير إلى انخفاض في تعبير الجينات المرتبطة بالحاجز المعوي. وبالتزامن مع ذلك، ارتفع تعبير mRNA لكل من Nlrp3 وIl1b وTnfa في القلب بمقدار 5.6 و6.5 و5.1 ضعفاً على التوالي. ويُعد جسيم الالتهاب NLRP3 مستشعراً هاماً في الجهاز المناعي الفطري، وقد ارتبط باعتلالات القلب السكرية. ويمكن أن تؤدي حالة فرط سكر الدم إلى زيادة تعبير جين Nlrp3 في عضلة القلب من خلال مسارات أنواع الأكسجين التفاعلية (ROS) والبروتين المتفاعل مع الثيوردوكسين (TXNIP)، مع آثار لاحقة على إشارات الالتهاب المرتبطة بـ IL-1β وIL-1821,22. كما وُصف زيادة الانتقال الجهازي لعديد السكاريد الشحمي (LPS) الناتج عن خلل الحاجز المعوي بأنه محفز أولي لتهيئة NLRP323. ويمكن لـ LPS أن يزيد من تعبير Nlrp3 وpro-Il1b عبر محور إشارات TLR4/MyD88/NF-κB، مما يوفر الإشارة الأولى المطلوبة لتهيئة جسيم الالتهاب24. وفي نموذج السكري الحالي، لوحظ زيادة في الوفرة النسبية لبكتيريا E. coli، إلى جانب انخفاض تعبير mRNA لبروتين Occludin في القولون وزيادة تعبير الجينات المرتبطة بجسيم الالتهاب في القلب. وتتوافق هذه التغيرات المتوازية مع مسار التهابي محتمل مرتبط بالأمعاء، ولكنها لا تثبت زيادة انتقال LPS أو وجود آلية سببية تربط الأمعاء بالقلب.
ارتبط التدخل الرياضي بزيادة في تعبير mRNA لبروتين Occludin في القولون ليصل إلى حوالي 79% من قيمة المجموعة الضابطة، بينما انخفض تعبير mRNA لـ Nlrp3 و Il1b و Tnfa في القلب إلى حوالي 2.3 و 2.7 و 2.1 ضعف قيم المجموعة الضابطة، على التوالي. وتشير هذه النتائج إلى وجود ارتباط بين ارتفاع تعبير الجينات المرتبطة بالحاجز المعوي وانخفاض تعبير الجينات الالتهابية القلبية بعد ممارسة الرياضة. وقد اقترحت دراسات سابقة أن الرياضة قد تدعم وظيفة الحاجز المعوي من خلال تعزيز إنتاج المخاط، وتنظيم بروتينات الوصلات المحكمة، وتحسين التروية المعوية25,26,27,28. ومع ذلك، اقتصرت البيانات الحالية على قياسات mRNA، وبالتالي لم تؤكد هذه الآليات الوظيفية.
أظهر تحليل مستهدف للميكروبيوتا المعوية أن التمرين كان مرتبطاً بعكس جزئي للتغيرات المرتبطة بمرض السكري في الوفرة النسبية ل taxa مختارة، ولا سيما زيادة في A. muciniphila وانخفاض في E. coli. وتتوافق هذه التغيرات المتبادلة مع الارتباطات الموصوفة سابقاً بين هذه الـ taxa وعمليات الحفاظ على الحاجز المعوي والعمليات المرتبطة بالذيفانات الداخلية29,30,31. ومع ذلك، وبما أنه تم قياس كميات taxa مختارة فقط، فينبغي تفسير النتائج على أنها تغيرات مرتبطة بالتمرين في الوفرة النسبية لبكتيريا محددة بدلاً من كونها إعادة تشكيل شاملة للميكروبيوتا المعوية.
حدد تحليل الارتباط علاقات إضافية بين أصناف ميكروبية مختارة وعلامات نسخية. ففي مجموعة التدخل الرياضي، ارتبطت وفرة A. muciniphila ارتباطاً سلبياً بالتعبير عن mRNA لكل من Nlrp3 (R = −0.81, P = 0.0046) و Tnfa (R = −0.80, P = 0.0054) في القلب. وفي المقابل، ارتبطت وفرة E. coli ارتباطاً إيجابياً بالتعبير عن mRNA لبروتين Occludin في القولون (R = 0.66, P = 0.036؛ الشكل 5C). وكان الارتباط الإيجابي بين E. coli و mRNA لبروتين Occludin مخالفاً للفرضية الأولية، مما يشير إلى أن العلاقة بين أصناف ميكروبات الأمعاء المختارة والتعبير الجيني المرتبط بالحاجز المعوي لم يتم تفسيرها بنموذج خطي بسيط. كانت هذه الارتباطات متسقة مع الروابط بين ممارسة الرياضة، والأصناف الميكروبية المختارة، والعلامات النسخية للمضيف، لكنها لم تثبت وجود علاقة سببية. وتوفر الأدلة السابقة التي تظهر أن استنزاف A. muciniphila يمكن أن يزيد من النفاذية المعوية وتسمم الدم الاستقلابي32، جنباً إلى جنب مع الأدلة التي تربط NLRP3 باعتلال القلب السكري33، سياقاً بيولوجياً لهذه الارتباطات. ومع ذلك، لم تثبت الدراسة الحالية بشكل مباشر أن زيادة A. muciniphila قد عززت وظيفة حاجز المخاط، أو قللت من انتقال LPS، أو خففت من التهاب القلب mediated بواسطة TLR4/NLRP3.
شملت هذه الدراسة عدة قيود. أولاً، استُخدم تفاعل البوليميراز المتسلسل الكمي (qPCR) المستهدف لـ 16S rRNA لتقدير ستة من الأصناف البكتيرية الممثلة بدلاً من تسلسل الأمبليكون لـ 16S أو التسلسل الميتاجينومي. وبناءً على ذلك، لم يتم تحقيق تقييم شامل لبنية المجتمع الميكروبي في الأمعاء وقدرته الوظيفية، ولم يكن من الممكن تقييم التحولات الأوسع في المجتمع أو المسارات الوظيفية. ولذلك، وُصفت النتائج بأنها تغيرات في الوفرة النسبية لأصناف مختارة بدلاً من إعادة تشكيل ميكروبيوم الأمعاء. ثانياً، لم يتم قياس مستويات LPS المنتشرة، وتركيزات SCFA في البلازما، ونفاذية الأمعاء بشكل مباشر، مما حد من التفسير الميكانيكي. ثالثاً، اعتمدت الدراسة بشكل أساسي على بيانات تعبير mRNA؛ حيث لم يتم إجراء التحقق الوظيفي وعلى مستوى البروتين لسلامة الحاجز، وتنشيط الجسيم الالتهابي (inflammasome)، والتليف، والموت الخلوي المبرمج (apoptosis). وعليه، اقتصرت الاستنتاجات على التغيرات النسخية ولم تثبت آثاراً وظيفية أو آثاراً على مستوى البروتين. رابعاً، تم فحص نظام واحد فقط من حيث شدة التمرين ومدته، مما حد من الاستنتاجات المتعلقة بوصفة التمرين المثلى للتغيرات النسخية القلبية المرتبطة بالسكري. خامساً، تمت دراسة ذكور الفئران فقط، وقد لا تكون النتائج قابلة للتعميم على الإناث. سادساً، أدى غياب مجموعة ضابطة من الفئران السليمة التي تمارس التمرين إلى الحد من القدرة على تمييز الاستجابات الخاصة بمرض السكري عن التأثيرات الفسيولوجية للتمرين. سابعاً، لم يتم إجراء تخطيط صدى القلب أو الفحص النسيجي المرضي للقلب؛ لذا وُصف النموذج بأنه نموذج فئران مصابة بالسكري بدلاً من كونه نموذجاً مؤكداً لاعتلال عضلة القلب السكري، واقتصرت جميع النتائج القلبية على التغيرات النسخية. وأخيراً، قد تكون بعض الارتباطات الملاحظة قد عكست انفصال المجموعات بدلاً من العلاقات البيولوجية داخل المجموعة الواحدة، على الرغم من استخدام تحليل الارتباط الجزئي مع التحكم في المجموعة لتقليل هذا الاحتمال.
باختصار، ارتبطت ممارسة تمارين جهاز المشي لمدة 8 أسابيع بتحسن في التمثيل الغذائي وتغيرات نسخية في القلب والقولون لدى الفئران المصابة بداء السكري. حدثت هذه التغيرات بالتزامن مع تغيرات في الوفرة النسبية لبعض المجموعات الميكروبية المعوية المختارة، ولا سيما الزيادة في A. muciniphila والنقصان في E. coli. وتدعم الارتباطات المرصودة إجراء المزيد من الاستقصاءات حول العلاقات بين التمرينات البدنية، ومجموعات ميكروبية معوية مختارة، والتعبير الجيني المرتبط بالحاجز المعوي، والنسخ المرتبط بالجسم الالتهابي في القلب. وستكون الدراسات المستقبلية التي تدمج توصيفاً أوسع للميكروبيوم، وتقدير كمية الأحماض الدهنية قصيرة السلسلة (SCFA)، ومقاييس النفاذية المعوية، والتحقق على مستوى البروتين أو النسيج، ضرورية لاختبار الآليات المقترحة وإثبات السببية. كما ستكون هناك حاجة إلى دراسات تداخل إضافية باستخدام نقل الميكروبيوم البرازي، أو مكملات A. muciniphila، أو تثبيط NLRP3 لتحديد ما إذا كانت الارتباطات الملحوظة تعكس مسارات سببية.
الإفصاحات
يصرح المؤلفون بعدم وجود أي مصالح مالية متنافسة أو علاقات شخصية قد يبدو أنها أثرت على العمل المذكور في هذه الورقة. لم يتم استخدام أي أدوات ذكاء اصطناعي في إعداد هذه المخطوطة أو الأشكال.
مساهمات المؤلفين:
قام كل من H.H. وG.Z. بتصور الدراسة وتصميمها. وقام H.H. وG.Z. وY.X. بإجراء التجارب على الحيوانات وجمع العينات. وأجرى H.H. وG.Z. تجارب البيولوجيا الجزيئية والحصول على البيانات. بينما قام H.H. وY.X. بإجراء التحليل الإحصائي. وقام H.H. بصياغة المخطوطة. وراجع H.W. المخطوطة بشكل نقدي للمحتوى الفكري الهام. وقد قرأ جميع المؤلفين المخطوطة النهائية ووافقوا عليها
شكر وتقدير
لم يتلق هذا البحث أي منحة محددة من وكالات التمويل في القطاعات العامة أو التجارية أو غير الربحية.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| جهاز قياس الجلوكوز Accu-Chek وشرائط الاختبار | Roche | Accu-Chek Active | يستخدم لقياس جلوكوز الدم صائم |
| محلل كيميائي حيوي أوتوماتيكي | Hitachi | 7180 | يستخدم للقياسات الكيميائية الحيوية للمصل |
| فئران C57BL/6J (ذكور، 8 أسابيع) | Beijing Vital River Laboratory Animal Technology Co., Ltd. | SCXK (Beijing) 2021-0006 | حيوانات تجريبية مستخدمة لإنشاء نموذج الفأر المصاب بالسكري |
| محلول منظم السيترات (0.1 mol/L, pH 4.5) | Sigma-Aldrich | C8532 | يستخدم لتحضير محلول الستريبتوزوتوسين |
| طقم مقايسة الممتز المترابط بالإنزيم (ELISA) لإنسولين الفئران | Wuhan HuaMei Biotech | CSB-E05070m | يستخدم لقياس إنسولين المصل |
| نظام غذائي عالي الدهون (60% kcal من الدهون) | Research Diets | D12492 | يستخدم لاستحثاث والحفاظ على نموذج السكري |
| إيزوفلوران | RWD Life Science | R510-22-10 | يستخدم للتخدير بالاستنشاق |
| جهاز طرد مركزي صغير | Eppendorf | 5424 R | يستخدم لطرد العينات مركزياً |
| مقياس الطيف الضوئي NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | يستخدم لتقييم تركيز ونقاء RNA |
| بارافورمالدهيد (4%, في PBS) | Servicebio | G1101 | يستخدم لتثبيت عينات الأنسجة |
| محلول ملحي منظم بالفوسفات (PBS) | Servicebio | G0002 | يستخدم لغسل وشطف عينات الأنسجة |
| Power SYBR Green PCR Master Mix | Applied Biosystems (Thermo Fisher) | 4367659 | يستخدم لتفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي |
| PrimeScript RT Reagent Kit (for qPCR) | TaKaRa (Takara Bio) | RR037A | يستخدم للنسخ العكسي لـ RNA إلى cDNA |
| QIAamp Fast DNA Stool Mini Kit | Qiagen | 51604 | يستخدم لاستخلاص DNA الميكروبي من عينات البراز |
| برنامج R Software | R Foundation | 4.2.0 | يستخدم للتحليل الإحصائي |
| نظام Real-time PCR (StepOnePlus) | Applied Biosystems (Thermo Fisher) | StepOnePlus | يستخدم لتضخيم وكشف تفاعل البوليميراز المتسلسل الكمي في الوقت الحقيقي |
| ستريبتوزوتوسين (STZ) | Sigma-Aldrich | S0130 | يستخدم مع نظام غذائي عالي الدهون لاستحثاث نموذج الفأر المصاب بالسكري |
| طقم تحليل الكوليسترول الكلي (TC) | Nanjing Jiancheng Bioengineering Institute | A111-1 | يستخدم لقياس الكوليسترول الكلي في المصل |
| جهاز سير كهربائي (بمحرك، مع التحكم في الميل) | Zhongshi Dichuang (Beijing) | ZS-PT-1 | يستخدم للتدخل الرياضي عبر جهاز السير الكهربائي |
| طقم تحليل الثلاثي غليسيريد (TG) | Nanjing Jiancheng Bioengineering Institute | A110-1 | يستخدم لقياس الثلاثي غليسيريد في المصل |
| كاشف TRIzol | Invitrogen (Thermo Fisher) | 15596018 | يستخدم لاستخلاص RNA الكلي من عينات الأنسجة |
المراجع
- Lu Y, et al. Vascular complications of diabetes: A narrative review. Medicine. 2023;102(40):e35285.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. International Journal of Molecular Sciences. 2022;23(7):3587.
- Abdullah AR, et al. A comprehensive review on diabetic cardiomyopathy (DCM): histological spectrum, diagnosis, pathogenesis, and management with conventional treatments and natural compounds. Naunyn-Schmiedeberg's Archives of Pharmacology. 2025;398(8):9929-9969.
- Hassooni FRH, et al. Advances in diabetic cardiomyopathy: current and potential management strategies and emerging biomarkers. Annals of Medicine and Surgery. 2025;87(1):224-233.
- Zhong L, et al. Exercise and dietary interventions in the management of diabetic cardiomyopathy: mechanisms and implications. Cardiovascular Diabetology. 2025;24(1):159.
- Ma X, et al. Beneficial effects of different types of exercise on diabetic cardiomyopathy. Biomolecules. 2025;15(9):1223.
- Liu Y, et al. Decoding the gut microbiota-immune dialogue: from bidirectional axis to therapeutic applications. Journal of Nanobiotechnology. 2026;24(1):469.
- Du L, et al. Lipopolysaccharides derived from gram-negative bacterial pool of human gut microbiota promote inflammation and obesity development. International Reviews of Immunology. 2022;41(1):45-56.
- Alhamar G, et al. Toll like receptor 4: A potential link between obesity and metabolic diseases. Obesity Reviews. 2026;16:e70107.
- Wu R, et al. Desulfovibrio vulgaris exacerbates sepsis by inducing inflammation and oxidative stress in multiple organs. Frontiers in Microbiology. 2025;16:1574998.
- Mohammadi K, Zhang D, Saris EJ. Strain-specific effects of Desulfovibrio on neurodegeneration and oxidative stress in a Caenorhabditis elegans PD model. npj Parkinson's Disease. 2025;11(1):236.
- Abbate A, et al. Interleukin-1 and the inflammasome as therapeutic targets in cardiovascular disease. Circulation Research. 2020;126(9):1260-1280.
- Chauhan R, et al. Decoding the gut microbiota-mitochondrial-inflammasome axis in cardiovascular disease. Molecular and Cellular Biochemistry. 2026;481(3):1081-1101.
- Yu C, et al. Exercise remodels Akkermansia-associated eicosanoid metabolism to alleviate intestinal senescence: Multi-omics insights. Microorganisms. 2025;13(6):1379.
- Zhang Y, et al. Enhancing intestinal barrier efficiency: A novel metabolic diseases therapy. Frontiers in Nutrition. 2023;10:1120168.
- Evangelista I, et al. Molecular dysfunction and phenotypic derangement in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2019;20(13):3264.
- Parim B, et al. Diabetic cardiomyopathy: molecular mechanisms, detrimental effects of conventional treatment, and beneficial effects of natural therapy. Heart Failure Reviews. 2019;24(2):279-299.
- Liu J, et al. The combination of exercise and metformin inhibits TGF-β1/Smad pathway to attenuate myocardial fibrosis in db/db mice by reducing NF-κB-mediated inflammatory response. Biomedicine & Pharmacotherapy. 2023;157:114080.
- Zhang X, et al. Exercise improves heart function after myocardial infarction: the merits of AMPK. Cardiovascular Drugs and Therapy. 2025;39(5):1153-1161.
- Berezin A. Metabolic memory phenomenon in diabetes mellitus: achieving and perspectives. Diabetes & Metabolic Syndrome: Clinical Research & Reviews. 2016;10(2):S176-S183.
- Date S, Bhatt LK. Exploring thioredoxin-interacting protein (TXNIP) as a therapeutic target for cardiovascular diseases. Archiv der Pharmazie. 2025;358(8):e70082.
- Zhang L, et al. NLRP3 inflammasome/pyroptosis: a key driving force in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2022;23(18):10632.
- Tilg H, et al. The intestinal microbiota fuelling metabolic inflammation. Nature Reviews Immunology. 2020;20(1):40-54.
- Huang P, et al. TREM2 deficiency aggravates NLRP3 inflammasome activation and pyroptosis in MPTP-induced Parkinson's disease mice and LPS-induced BV2 cells. Molecular Neurobiology. 2024;61(5):2590-2605.
- Li T, et al. Six weeks of moderate-intensity treadmill exercise improves intestinal barrier and intestinal inflammation in Parkinson's disease mice. Molecular Neurobiology. 2025;62(8):10779-10791.
- He XQ, et al. Prevention of ulcerative colitis in mice by sweet tea (Lithocarpus litseifolius) via the regulation of gut microbiota and butyric-acid-mediated anti-inflammatory signaling. Nutrients. 2022;14(11):2208.
- Wang J, et al. Microbial short chain fatty acids: Effective histone deacetylase inhibitors in immune regulation. International Journal of Molecular Medicine. 2025;57(1):16.
- Deng F, et al. Intestinal ischemia/reperfusion injury: mechanisms, diagnosis, and therapeutic advances. International Journal of Biological Sciences. 2026;22(8):4059.
- Mo C, et al. The influence of Akkermansia muciniphila on intestinal barrier function. Gut Pathogens. 2024;16(1):41.
- Di Vincenzo F, et al. Gut microbiota, intestinal permeability, and systemic inflammation: a narrative review. Internal and Emergency Medicine. 2024;19(2):275-293.
- Birg A, Lin HC. The role of bacteria-derived hydrogen sulfide in multiple axes of disease. International Journal of Molecular Sciences. 2025;26(7):3340.
- Macchione IG, et al. Akkermansia muciniphila: key player in metabolic and gastrointestinal disorders. European Review for Medical and Pharmacological Sciences. 2019;23(18):8075-8083.
- Song S, et al. Sirtuin 3 deficiency exacerbates diabetic cardiomyopathy via necroptosis enhancement and NLRP3 activation. Acta Pharmacologica Sinica. 2021;42(2):230-241.