تصف هذه الدراسة بروتوكولاً لتقدير كمية الأمينات الحيوية في أدمغة ذبابة Drosophila باستخدام تقنية الكروماتوغرافيا السائلة عالية الأداء المقترنة بالكشف الكهروكيميائي (HPLC-ECD). ومن خلال الاستفادة من القابلية للتعديل الوراثي في Drosophila وتقنية HPLC-ECD، يمكن لهذا النهج أن يساعد الباحثين في توضيح الآليات الجزيئية والوراثية الكامنة وراء التغيرات في الأمينات الحيوية في اضطرابات الدماغ.
مقالة منهجية
استخدام تقنية الكروماتوغرافيا السائلة عالية الأداء لدراسة التغيرات في الأمينات الحيوية في نماذج Drosophila لاضطرابات الدماغ
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
تتميز العديد من الاضطرابات النفسية العصبية والتنكسية العصبية باختلالات في النواقل العصبية للدماغ، بما في ذلك تغيرات في مستويات الأمينات الحيوية (BAs) مثل الدوبامين (DA) والسيروتونين (5-hydroxytryptamine; 5-HT)، فضلاً عن تغيرات في إطلاقها أو إعادة امتصاصها. وترتبط هذه التغيرات الكيميائية العصبية بأنماط ظاهرة سلوكية رئيسية ومتميزة، مثل القصور في الحركة، وتجزؤ النوم، واستجابات الإجهاد المتغيرة، وغيرها. ونظراً لتفاعل أنظمة الأمينات الحيوية الرئيسية، فإن نماذج الأمراض غالباً ما تظهر تحولات منسقة عبر عدة أمينات بدلاً من تغيرات معزولة في ناقل عصبي واحد. ولذلك، يعد التحديد الكمي الدقيق والمتزامن لعدة أمينات حيوية أمراً أساسياً لتفسير النتائج السلوكية والجينية. وتوفر Drosophila melanogaster نظاماً قابلاً للتطويع جينياً لنمذجة مثل هذه الاضطرابات وتغيرات النواقل العصبية، ولكن الأمينات الحيوية توجد في أنسجة دماغ الذبابة بتركيزات منخفضة جداً تتراوح من النانومولار إلى الفيمتومولار، كما أن الحجم الصغير للجهاز العصبي المركزي في Drosophila يجعل اكتشافها تحدياً تقنياً. تصف هذه الدراسة بروتوكولاً للكشف عن الدوبامين (DA)، والسيروتونين (5-HT)، والأوكتوبامين وتحديد كمياتها في أدمغة الذباب باستخدام الكروماتوغرافيا السائلة عالية الأداء المقترنة بالكشف الكهروكيميائي (HPLC-ECD). وقد طُبق تقنية HPLC-ECD للكشف عن التغيرات في مستويات DA و 5-HT في الدماغ ضمن نموذج ذبابة لمرض باركنسون يعتمد على فرط التعبير الدوباميني لبروتين alpha-synuclein البشري. ويكشف تطبيق هذا البروتوكول على نموذج مرض باركنسون الناتج عن alpha-synuclein عن ارتفاع ملحوظ في الدوبامين، مع بقاء السيروتونين دون تغيير بالنسبة لمجموعات الضبط، وهو ما يتفق مع آليات التعويض الدوبامينية المبكرة. توفر هذه الطريقة وسيلة حساسة ومنخفضة التكلفة وسهلة الوصول للتحديد الكمي المتعدد للأمينات الحيوية من أنسجة Drosophila المحدودة. كما أنها تتيح الفرز المنهجي للمعدلات الجينية والعلاجات المرشحة التي تستهدف مسارات أحادي الأمين ذات الصلة باضطرابات الدماغ البشري.
المقدمة
تُعرف الناقلات العصبية أحادية الأمين، والتي تسمى أيضاً الأمينات الحيوية (BAs)، بقدرتها على تنظيم العديد من السمات العصبية والسلوكية الرئيسية عبر مختلف المجموعات الحيوانية، بما في ذلك، على سبيل المثال لا الحصر، الحالات التحفيزية، والنوم، والتعلم، والذاكرة، وتنظيم المزاج1,2,3,4. ويُعد خلل تنظيم الأمينات الحيوية، مثل الدوبامين (DA) والسيروتونين (5-hydroxytryptamine; 5-HT)، سمة حرجة في الاضطرابات التنكسية العصبية مثل مرض باركنسون، بالإضافة إلى الاضطرابات النفسية مثل الفصام3,5. ومع ذلك، فإن العلاقة بين تطور المرض والتغيرات الكيميائية العصبية المحددة عبر مناطق الدماغ والأنواع الفرعية للخلايا العصبية لم يتم رسم خارطتها بالكامل بعد. وتتطلب الإجابة عن مثل هذه الأسئلة نظاماً نموذجياً ليس فقط قابلاً للتطويع جينياً، بل وقادراً أيضاً على إعادة إنتاج الأنماط الظاهرية الفسيولوجية والسلوكية ذات الصلة بالمرض. وقد ظهرت Drosophila melanogaster كنظام نموذجي قوي لهذا الغرض6,7. حيث تمتلك ذبابة الفاكهة مجموعات متميزة ومحددة جيداً من الخلايا العصبية الدوبامينية والسيروتونينية7,8، كما أن المسارات الاصطناعية الحيوية، والناقلات، وعائلات المستقبلات التي تحكم هذه الأنظمة محفوظة وظيفياً مقارنة بنظيراتها في الثدييات9. ويوفر هذا الحفظ أساساً ميكانيكياً لنقل النتائج الكيميائية العصبية في الذبابة إلى السياق الأوسع للأمراض البشرية.
تتجاوز فائدة الذباب في نمذجة الاضطرابات العصبية والنفسية مجرد التماثل الجيني. وباعتباره نظاماً قابلاً للتطويع جينياً، تتيح الأدوات المتاحة في الذباب إجراء فحص محدد للخلايا للجينات والمسارات، مما يكشف عن العوامل التي قد تؤدي إما إلى تفاقم أو عكس الأعراض ذات الصلة بالمرض، وهو ما يسهل اكتشاف أهداف علاجية جديدة10. علاوة على ذلك، يمكن لأنظمة التعبير الثنائية استهداف ليس فقط الأنواع الفرعية من الخلايا العصبية أحادية الأمين المحددة، بل وأيضاً نوافذ نمائية معينة11، مما يوفر دقة مكانية وزمنية ملحوظة. كما يوفر نظام نموذج ذبابة الفاكهة مجموعة من السلوكيات القابلة للقياس التي يمكن استخدامها لتقييم محاكاة الأعراض ذات الصلة بالمرض، فضلاً عن اختبار استراتيجيات التدخل لإنقاذها7. على سبيل المثال، تشمل النماذج الجينية الراسخة لمرض باركنسون في الذباب حيوانات تحمل طفرات فقدان الوظيفة في Pink1 و parkin، بالإضافة إلى ذباب يفرط في التعبير عن نسخ النوع البري أو نسخ ذات طفرات نقطية من بروتين α-synuclein البشري (α-syn)، SNCA12,13,14. تظهر جميع نماذج الذباب هذه بعضاً من أهم السمات المميزة للمرض، بما في ذلك العجز الحركي، وتنكس الخلايا العصبية الدوبامينية، والخلل الوظيفي في الميتوكوندريا، وتجمع α-syn في الذباب الذي يحمل التسلسل البشري15,16,17,18,19. ومن ناحية أخرى، تُعتبر الاضطرابات النمائية العصبية وإشارات الدوبامين الشاذة أيضاً من بين الأسباب الكامنة وراء اضطرابات مثل الفصام20. وتماشياً مع ذلك، استُخدمت Drosophila لنمذجة أعراض شبيهة بالفصام، بما في ذلك فرط النشاط، وتغير الاستجابة الحسية، وانخفاض اليقظة في الذباب البالغ21,22,23,24,25. وبوجه عام، تثبت هذه النماذج أن Drosophila يمكنها محاكاة كل من تطور الاضطرابات التنكسية العصبية والأصول النمائية للاضطرابات النفسية.
يتطلب ربط التغيرات السلوكية في النماذج الجينية بالتغيرات الكيميائية العصبية قياسات كمية دقيقة وقابلة للتكرار للأمينات الحيوية (BAs). كما أن خلل تنظيم أحادي الأمين في العديد من الأمراض لا يقتصر على نظام ناقل عصبي واحد. ففي ذباب طفرة Pink1B9، ينخفض محتوى السيروتونين ويتضرر نشاط ناقل السيروتونين قبل ظهور الخلل الوظيفي الحركي26. ويؤدي الإنقاذ الدوائي المبكر لإشارات السيروتونين إلى منع الفقد اللاحق للعصبونات الدوبامينية المتأثرة في ذباب طفرة Pink1B9. وبالتالي، يمكن أن تسبق التغيرات السيروتونينية الاعتلال الدوباميني وتساهم فيه سببيًا، وهي علاقة ستكون غير مرئية عند الاعتماد على القراءات السلوكية أو قياسات تحليل واحد فقط. وبالمثل، لوحظت تغيرات في النظام السيروتونيني في نماذج الفصام22,27,28. علاوة على ذلك، تتفاعل الأمينات الحيوية الرئيسية في Drosophila بطرق تكرارية جزئيًا وتضادية جزئيًا، بحيث تكون حالة نظام واحد مؤشرًا غير دقيق للأنظمة الأخرى29. لذا، فإن تحديد كمية كل أمين حيوي على حدة في هذه النماذج يعد أمرًا بالغ الأهمية.
الأمينات الحيوية هي أحاديات أمين نشطة كهروكيميائياً (مثل الكاتيكولامينات والإندولامينات) توجد بتركيزات منخفضة تتراوح من النانومولار إلى الفيمتومولار في الأنسجة البيولوجية، مما يجعل الكشف المتزامن عنها أمراً صعباً من الناحية التقنية30,31. وبناءً على ذلك، فإن الإجابة على التساؤلات المتعلقة بالأساس الجيني والجزيئي لتغيرات الأمينات الحيوية في الأمراض تتطلب طريقة تحليلية قادرة على الفصل بين عدة أمينات متشابهة هيكلياً. كما يجب أن تكون هذه الطريقة قادرة على الكشف عن التركيزات ذات الصلة بيولوجياً في أحجام الأنسجة الصغيرة المتاحة من تحضيرات الجهاز العصبي المركزي لذبابة Drosophila. ويلبي الكروماتوغرافيا السائلة عالية الأداء (HPLC) المقترنة بالكشف الكهروكيميائي (ECD) هذه المتطلبات. حيث تُعد HPLC تقنية تحليلية تسمح بفصل الجزيئات المختلفة داخل العينة بناءً على خصائصها الفيزيائية والكيميائية. ويؤدي ربط النظام الكروماتوغرافي بكاشف كهروكيميائي إلى تمكين التحليل السريع وعالي الحساسية للمواد المراد تحليلها والنشطة كهروكيميائياً مثل الأمينات الحيوية. وتعمل الكواشف الكهروكيميائية عن طريق تحفيز الأكسدة عند خروج المواد المراد تحليلها من العمود، مما يحول التفاعلات عند سطح القطب الكهربائي إلى إشارة كهربائية قابلة للقياس الكمي. وقد توفر تقنيات أخرى، مثل مطيافية الكتلة، انتقائية وحساسية مماثلة32,33. ومع ذلك، فإن التكلفة المنخفضة لكل عينة وموثوقية تقنية HPLC-ECD تجعلها مثالية للكشف الروتيني والميسر عن الأمينات الحيوية في مختبرات الأبحاث البيولوجية. إن الجمع بين هذه التقنية وقوة وراثة Drosophila يتيح تحليلاً سريعاً ومباشراً للأساس الجيني والجزيئي للتغيرات في الأنظمة الأمينية.
تستخدم هذه الدراسة نموذجًا جينيًا لمرض باركنسون يعتمد على الإفراط في تعبير α-syn لتقديم بروتوكول لتحديد الاختلافات في محتوى BA في عينات دماغ Drosophila. كما يصف المقال كيف يمكن استخدام هذا النهج لدراسة الأساس الجزيئي لاضطرابات الدماغ.
البروتوكول
البيانات الخام المعروضة في هذا العمل متاحة على https://doi.org/10.6084/m9.figshare.33868519.
الكواشف والمعدات المستخدمة مدرجة في جدول المواد.
1. تدريب وجمع الذباب
- قم بضبط الإيقاع الحيوي للذباب المستهدف تحت دورات ثابتة من 12 h من الضوء و12 h من الظلام، عند درجة حرارة ثابتة 25 °C، لمدة 3 أيام قبل عملية الجمع. ولضمان تحضير عدد كافٍ من الذباب لكل نمط جيني/حالة، قم بضبط الإيقاع لـ 3–9 مكررات بيولوجية تتكون كل منها من 5 ذبابات.
- في يوم الجمع، ضع أنابيب سعة 1.5 mL على الثلج الجاف. استخدم أنبوباً واحداً لكل نمط جيني/حالة من الذباب. باستخدام قمع، أفرغ الذباب مباشرة في الأنابيب لتجميدها سريعاً.
ملاحظة: يسمح الجمع المباشر على الثلج الجاف بإجراء عملية الجمع في أوقات مختلفة من اليوم دون التأثيرات الضارة المحتملة للتخدير. وفي هذه المرحلة، يمكن تخزين العينات عند -80 °C إلى أجل غير مسمى أو معالجتها على الفور. اجمع المجموعات التجريبية والمجموعات الضابطة في الوقت نفسه لتجنب أي تأثيرات مربكة ناتجة عن التغيرات المرتبطة بالوقت من اليوم. وفي النتائج التمثيلية الحالية، تم جمع الذباب بعد 3 h من مرحلة إضاءة المصابيح.
2. تشريح الدماغ وتحضير العينات
- للتحضير لتشريح الأنسجة، استخدم حاوية ذات مستوى منخفض، مثل غطاء صندوق رؤوس الماصات، واملأها بالثلج. ضع طبق بتري بقطر 30 mm في الأعلى ليكون بمثابة منصة للتشريح. إن إجراء تشريح الأنسجة على الثلج، خاصة عند استخدام مجهر ستيريو ذو إضاءة دافئة، يمنع تحلل الأنسجة.
- ضع قطرة بحجم 200 µL من محلول Phosphate-Buffered Saline (PBS) بتركيز 1x مبرد بالثلج على الطبق، وتحت مجهر ستيريو، قم بتشريح كل ذبابة باستخدام ملاقط دقيقة وحادة.
- لتشريح الدماغ، أمسك ذبابة واحدة من البطن باستخدام زوج واحد من الملاقط واغمرها في قطرة PBS. ودون إفلات الذبابة، قم بإزالة الرأس عن طريق الإمساك بنقطة الاتصال بين الرأس والجسم.
- سوف يطفو كل من الجسم والرأس على محلول PBS. أزل الجسم من القطرة وتخلص منه. وباستخدام زوج من الملاقط، أمسك الرأس من الخرطوم لدفعه مرة أخرى إلى داخل قطرة PBS.
- باستخدام زوج الملاقط الحر، أمسك حافة العين لتثبيت الرأس وقم بإزالة الخرطوم.
- أمسك الأنسجة المحيطة بالفتحة التي نتجت عن إزالة الخرطوم واسحبها. من المفترض أن ينكشف الدماغ.
- نظف الدماغ بلطف لإزالة أي بقايا من الرأس، حيث إن أي أنسجة متبقية قد تؤثر على الكمية المقاسة. أيضاً، خذ ذبابة واحدة في كل مرة من الأنبوب الموجود على الثلج الجاف لمنع تحلل العينات.
- باستخدام رأس ماصة، انقل حجماً صغيراً يحتوي على الدماغ المشرح مباشرة إلى أنبوب يحتوي على 1x PBS مبرد بالثلج. كرر هذه الخطوة حتى يتم تجميع ما مجموعه خمسة أدمغة لكل مكرر بيولوجي. ولمنع التصاق الدماغ برأس الماصة، قم بتهيئة الرأس باستخدام المحلول من طبق التشريح أولاً عن طريق السحب والدفع لعدة مرات.
- بمجرد اكتمال التشريح، قم بإجراء طرد مركزي قصير لمدة 10-s بسرعة 2,000 x g لتجميع الأدمغة في قاع الأنبوب.
- استبدل 1x PBS بعناية بـ 50 µL من حمض Perchloric Acid (PCA) بتركيز 0.2 N على الثلج.
تنبيه: حمض PCA مسبب للتآكل بشدة. قم بتحضير الحصص مسبقاً تحت غطاء سحب الأدخنة واستخدم معدات الوقاية الشخصية المناسبة أثناء التعامل معه. ويشمل ذلك نظارات واقية مقاومة للمواد الكيميائية، وقفازات نيوبرين شديدة التحمل، ومئزر مطاطي.
ملاحظة: بدلاً من ذلك، يمكن أيضاً تجميع الأدمغة فوراً في 50 µL من 0.2 N PCA. في هذه الحالة، استخدم إبرة لنقل الأدمغة لتجنب النقل غير المرغوب فيه لمحلول PBS. - استخدم مجانس فوق صوتي لتجنيس الأنسجة. تحكم في السعة لتجنب تولد الحرارة. نستخدم هنا 10 kHz مع دورات من نبضات قصيرة مدتها 3-s متبوعة بـ 3 s على الثلج.
- قم بطرد العينة مركزياً لمدة 15 min بسرعة 15,000 x g وعند درجة حرارة 4 °C. اجمع 40 µL من السائل الطافي في أنبوب جديد محفوظ على الثلج. إن الاحتفاظ بالعينات في PCA يمنع أكسدة BA. تجنب جمع الأنسجة في هذه الخطوة لأنها من المحتمل أن تسد النظام. إذا تم جمع بعض الأنسجة، يمكن استخدام مرشحات سرنجية، ولكن استرداد العينة سيتأثر سلباً.
- قبيل تشغيل العينات مباشرة، أضف 8 µL من Sodium Acetate بتركيز 1 M. وهذا يجعل الرقم الهيدروجيني pH للعينة أقرب إلى الرقم الهيدروجيني pH للطور المتحرك وهو 3.5، مما يحافظ على شكل القمة أثناء مرور العينة عبر الكاشف. العينات الآن جاهزة للحقن.
3. تحضير الطور المتحرك
- قم بتحضير 1 L من الطور المتحرك سترات-أسيتات عن طريق إضافة 870 mL من الماء فائق النقاء إلى زجاجة.
- أضف 5.61 g من خلات الصوديوم ثلاثية الهيدرات و 8.79 g من حمض الستريك اللامائي إلى الأواني الزجاجية وامزج حتى الذوبان. تأكد من أن pH هو 3.5؛ وإذا لم يكن كذلك، قم بتعديله وفقًا لذلك.
- داخل خزانة طرد الغازات، أضف 130 mL من الميثانول بدرجة HPLC.
- أضف 130 mg من هيدرات 1-أوكتان سلفونات الصوديوم وامزج جيداً.
- قم بترشيح المحلول بالتفريغ باستخدام مرشح 0.2 µm مع التقليب لمدة 1 h. يسمح التقليب للغازات المحتبسة بالخروج من المحلول، ويساعد التفريغ في ذلك وفي عملية الترشيح.
- قم بمعالجة المحلول بالموجات فوق الصوتية في حمام سونيك (42 kHz) لمدة 30 min لإزالة فقاعات الهواء.
- غلف الحاوية بورق الألومنيوم وضع عليها الملصق المناسب.
ملاحظة: تؤثر جودة الكواشف بشكل كبير على أوقات الاحتجاز. يساعد استخدام كواشف بدرجة HPLC في الحفاظ على الاتساق عبر عمليات التشغيل. كما أن استخدام نفس الكواشف عند إعادة تحضير الطور المتحرك يحافظ على اتساق النتائج.
4. تحضير المعايير
- لتحضير المحاليل القياسية، قم بوزن 10 mg من كل من OA وDA و5-HT بشكل منفرد على ورق وزن.
- ضع الكمية الموزونة في زجاجات زجاجية منفصلة سعة 125 mL لتحضير المحاليل المخزنية الفردية. أعد وزن الورق الفارغ لحساب الكمية الدقيقة من OA أو DA أو 5-HT التي نُقلت إلى الزجاجات.
- احسب كمية المذيب الواجب إضافتها للوصول إلى تركيز 100 ng/µL من المادة المراد تحليلها. في حال إضافة 10 mg كاملة، استخدم 100 mL من المذيب. بالنسبة لـ OA وDA، استخدم حمض الهيدروكلوريك بتركيز 0.1 M كمذيب. أما بالنسبة لـ 5-HT، فاستخدم حمض الأسيتيك بتركيز 0.1 M بدلاً من ذلك.
- أضف 2Na-EDTA إلى المحاليل القياسية ليصل التركيز النهائي إلى 1 mg/mL. امزج جيداً حتى الذوبان التام. غلف الزجاجة بورق ألومنيوم لحمايتها من الضوء واحفظها في درجة حرارة 4 °C.
ملاحظة: يمكن تخزين المحاليل القياسية لمدة تصل إلى 3 أشهر تحت هذه الظروف.
5. تحضير محاليل المعايرة
ملاحظة: لإنشاء منحنى معايرة، قم بتحضير ثلاثة معايير من الأحماض الصفراوية (BAs) المختلطة بتركيزات مختلفة. في هذا المثال، نستخدم محاليل عمل بتركيزات 0.03 ng/µL و0.01 ng/µL و0.001 ng/µL. سيؤدي حقن 10 µL إلى الحصول على كميات معيارية قدرها 0.3 ng و0.1 ng و0.01 ng على التوالي.
- ابدأ بتحضير خليط مخزون بتركيز 1 ng/µL عن طريق إضافة 1 µL من كل مخزون BA بتركيز 100 ng/µL إلى 97 µL من 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA. اخلط المزيج جيداً.
- خذ 2 µL من المخزون بتركيز 1 ng/µL وأضفها إلى 64.6 µL من 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA. اخلط المزيج جيداً. يمثل هذا المحلول العامل بتركيز 0.03 ng/µL.
- خذ 2 µL من المخزون بتركيز 1 ng/µL وأضفها إلى 18 µL من 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA. اخلط المزيج جيداً. يمثل هذا المحلول العامل بتركيز 0.1 ng/µL. لا يتم حقن هذا المحلول في هذا البروتوكول، بل يُستخدم فقط لإجراء التخفيفات التسلسلية.
- خذ 4 µL من المخزون بتركيز 0.1 ng/µL وأضفها إلى 36 µL من 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA. اخلط المزيج جيداً. يمثل هذا المحلول العامل بتركيز 0.01 ng/µL.
- أخيراً، خذ 4 µL من المخزون بتركيز 0.01 ng/µL وأضفها إلى 36 µL من 0.02 M Acetic Acid-1 mg/mL 2Na-EDTA. اخلط المزيج جيداً. يمثل هذا المحلول العامل بتركيز 0.001 ng/µL.
ملاحظة: ضع هذه المعايير في صندوق محمي من الضوء. يجب تحضير جميع معايير المحاليل العاملة بشكل طازج.
6. إعداد وتشغيل عملية الحقن
ملاحظة: تعمل جميع أنظمة HPLC وفقاً لنفس المبادئ. ومع ذلك، فإن الاختلافات في المكونات المادية قد تؤدي إلى فرق كبير في زمن الاستبقاء وطول فترة التشغيل. علاوة على ذلك، فإن حساسية كاشف ECD ستؤدي إلى حدود كشف مختلفة، والتي سيتعين تحديدها تجريبياً. استخدمت هذه الدراسة نظام كروماتوغرافيا سائلة عالية الأداء (HPLC) مجهزاً بعمود C18 ذي طور معكوس.
- قم بتشغيل جهاز HPLC، بما في ذلك المضخة والكاشف الكهركيميائي. اضبط معدل التدفق على 100 µL/min واترك الكاشف الكهركيميائي حتى يصل إلى خط أساس مستقر. تستغرق هذه العملية من 10 min إلى 30 min.
- بمجرد أن تصبح العينات جاهزة للحقن، اضبط معدل التدفق على 500 µL/min. اترك النظام يستقر لمدة 5 min. وفي هذه الأثناء، قم بغسل حقنة Hamilton سعة 20 µL ثلاث مرات بالماء عالي النقاء.
- اسحب 10–20 µL من العينة في الحقنة. سيعتمد الحجم على سعة حلقة العينة. راجع دليل حلقة العينة لمزيد من المعلومات.
- تأكد من عدم وجود فقاعات في الحقنة عند الحقن؛ إذ إن أي غاز محبوس سيتداخل مع الضخ الصحيح للطور المتحرك أو قياسات ECD. في حالة وجود فقاعات، قم بإرجاع العينة ومحاولة تعبئة الحقنة مرة أخرى.
- أدخل الإبرة بالكامل في منفذ الحقن. اضبط الرافعة على وضع التحميل (load) ثم احقن العينة عن طريق دفع مكبس الحقنة حتى يخرج كل السائل من الحقنة. اخفض رافعة الحاقن إلى وضع الحقن (inject). بذلك يبدأ التشغيل، ومن المتوقع في ظل هذه الظروف أن يكتمل في غضون 30–35 min.
- إذا كانت هناك عينات أخرى مطلوب تحليلها، اترك النظام يعمل لمدة 10–15 min بمعدل تدفق 500 µL/min قبل حقن العينة التالية.
ملاحظة: إذا كانت هناك تذبذبات مستمرة في إشارة ECD، فتحقق من وجود تغيرات في ضغط النظام. يمكن أن يتسبب الغاز المحبوس في النظام في تدفق غير منتظم وزيادة في الخلفية عن المستوى الطبيعي. لتجاوز هذه المشكلة، قم بتطهير النظام بمحلول جديد بسرعة عالية، مع تجاوز الكاشف ECD.
7. استرجاع البيانات وتحليلها
ملاحظة: تتوفر العديد من المحولات التناظرية الرقمية والبرامج لجمع هذا النوع من البيانات وتحليلها. وقد تختلف هذه الأدوات في كيفية معالجة البيانات؛ ومع ذلك، فإنها تشترك في المبادئ العامة. استخدمت هذه الدراسة برنامج تحويل البيانات وبرنامج الحصول على بيانات الكروماتوغرافيا وتحليلها، على التوالي.
- سيتم تحويل التغيرات في التيار/الجهد الناتجة عن أكسدة الـ BAs، والتي يرصدها الـ ECD، بواسطة المحول التماثلي الرقمي. ويتناسب تركيز الـ BAs طردياً مع التغير في التيار/الجهد.
- استخدم المساحة تحت المنحنى المستخلصة من رسوم التيار مقابل الزمن لعمليات تشغيل معايير الـ BAs لتقدير منحنى المعايرة. سيتم تمثيل القيم بواسطة انحدار خطي في رسم بياني للتيار/الجهد (nA أو mV) مقابل الكمية (ng).
- باستخدام المعادلة الخطية، احسب تركيز الـ BAs في عينتك.
النتائج
تتأكسد المركبات البيولوجية عند فولتات مختلفة. وفي مصفوفة معقدة، مثل أنسجة الدماغ، فإن اختيار جهد الكشف الكهروكيميائي (ECD) المناسب سيتيح تقديراً كمياً أكثر دقة ونقاءً. هنا، اخترنا فولتجين مختلفين لإظهار تأثير هذا العامل على تحديد وتقدير كمية OA وDA و5-HT في عينات دماغ Drosophila. باستخدام 950 mV، يمكننا الكشف بسهولة عن هذه الأمينات الثلاثة في خليط واحد (الشكل 1A)، بينما لا يُلاحظ سوى الدوبامين والسيروتونين عند 650 mV (الشكل 1B). وهذا يتفق مع فولتات الأكسدة لهذه المركبات: 900–1000 mV لـ OA، و600–700 mV لـ DA و5-HT. تبلغ أوقات الاستبقاء لـ OA وDA و5-HT هي 6 min و11 min و29 min على التوالي. يؤدي تقدير كميات ثلاث مختلفة، وهي 0.01 ng و0.1 ng و0.3 ng، إلى منحنيات معايرة قابلة للمقارنة عند 950 mV أو 650 mV (الشكل 1C,D على التوالي). وتوضح هذه المنحنيات الخطية والحساسية للمقايسة لكل مادة تحليلية عبر نطاق التركيز المختبر عند كل جهد كشف.
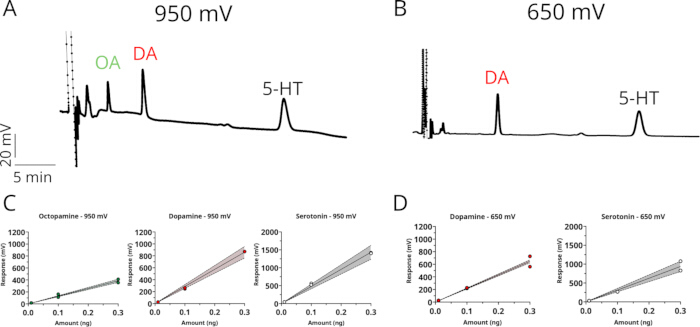
الشكل 1: الكشف عن الأمينات الحيوية وتقديرها كمياً بواسطة HPLC-ECD عند جهدي أكسدة. (A,B) كروماتوغرامات تمثيلية تظهر فصل معايير الأوكتوبامين (OA)، والدوبامين (DA)، والسيروتونين (5-HT) التي تم الكشف عنها عند جهد مطبق قدره (A) 950 mV أو (B) 650 mV. المحور الرأسي: الاستجابة (mV)؛ المحور الأفقي: زمن الاستبقاء (5 min لكل علامة، كما يوضح شريط المقياس). (C,D) منحنيات المعايرة لكل مادة تحليلية عند (C) 950 mV و (D) 650 mV، حيث تم رسم استجابة الذروة (mV) مقابل كميات المعيار (ng; 0.01–0.3 ng). تمثل الخطوط المتصلة ملاءمة الانحدار الخطي، وتشير النطاقات المظللة إلى فترات الثقة بنسبة 95%، بينما تمثل الدوائر الممتلئة والمفتوحة حقنتين معياريتين فرديتين لكل تركيز. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
عادةً ما تكون العينات المعقدة، مثل تلك المستخلصة من الدماغ، مسؤولة عن وجود خلفية بيولوجية كبيرة. وباتباع البروتوكول الموضح هنا، شرعنا في تحديد تأثير جهد القطب الكهربائي على كشف وتقدير كمية الـ BAs في عينات الدماغ. تم جمع الذباب الذكور البالغين عند تشغيل الأضواء بعد يومين كاملين من التدريب، وشُرِّحت الأدمغة في محلول PBS مبرد بالثلج ثم وُضعت في محلول PCA بتركيز 0.2 N على الثلج. وبعد تفكيك الأنسجة والطرد المركزي، تمت موازنة الطافي باستخدام أسيتات الصوديوم بتركيز 1 M، وحُقن 10 µL منه. يؤدي ضبط جهد القطب الكهربائي عند 950 mV إلى ظهور قمم للأوكتوبامين والدوبامين والسيروتونين عند أزمنة الاستبقاء الخاصة بكل منها (الشكل 2A، المنحنى الأسود). وتم التأكد من هويات هذه المواد بشكل أكبر عن طريق تحليل عينة مدعمة بكميات معروفة (0.01 ng من كل منها) من كل BA (الشكل 2A، المنحنى الأحمر). ومع ذلك، لوحظت عدة قمم إضافية بالقرب من المواد التحليلية المستهدفة، مما قد يؤدي إلى تعقيد عملية التقدير الكمي. ويحل ضبط جهد القطب الكهربائي عند 650 mV هذه المشكلة على حساب كشف الأوكتوبامين (الشكل 2B). وكما هو موضح في الشكل 1، لا يتم فصل OA عند 650 mV، وهو ما يتوافق مع جهد أكسدته الأعلى.
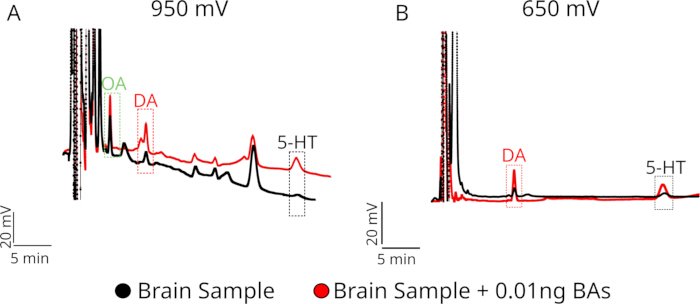
الشكل 2: تحديد الأمينات الحيوية الداخلية في عينات الدماغ عن طريق تعزيز القمة (الإضافة المعيارية) عند جهدين للأكسدة. (A,B) كروماتوغرامات تمثيلية لمستخلص نسيج دماغي تم تحليله بواسطة HPLC-ECD عند جهد مُطبق قدره (A) 950 mV أو (B) 650 mV، معروضة قبل (الأثر الأسود، "عينة الدماغ") وبعد (الأثر الأحمر، "عينة الدماغ + 0.01 ng BAs") الإضافة المعيارية لكمية معروفة (0.01 ng) من معايير octopamine (OA)، وdopamine (DA)، وserotonin (5-HT). تشير المربعات المتقطعة إلى نوافذ زمن الاستبقاء لكل مادة مُحللة. المحور الرأسي: الاستجابة (20 mV، موضح بالمقياس)؛ المحور الأفقي: زمن الاستبقاء (5 min، موضح بشريط المقياس). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
وباتباع البروتوكول ذاته، استخدمنا تقنية الكروماتوغرافيا السائلة عالية الأداء مع الكشف الكهركيميائي (HPLC-ECD) للكشف عن الاختلافات في محتوى الأمينات الحيوية في أدمغة الذباب الذي يعبر عن αبروتين -synuclein في العصبونات الدوبامينية (TH-T2A-GAL4) > UAS-SNCA.J34)، وهو نموذج من الذباب لمرض باركنسون. وقد استخدمت دراسات سابقة نموذجاً لمرض باركنسون يعتمد على طفرات في جين Pink1 أظهرت اختلافات في مستويات الدوبامين في الذباب في سن صغيرة تتراوح بين 0 و3 أيام.35هنا، استُخدمت ذبابات تتراوح أعمارها بين 3 و6 أيام لمقارنة مستويات الدوبامين والسيروتونين. وقد ارتفعت مستويات الدوبامين بشكل ملحوظ في ذبابات مرض باركنسون (PD)، مقارنة بذبابات المجموعة الضابطة (الشكل 3أ)، بينما ظلت مستويات السيروتونين دون تغيير (الشكل 3Bوقد تعكس مستويات الدوبامين المرتفعة في المراحل المبكرة آليات تعويضية تسبق ظهور أعراض مرض باركنسون في هذا النموذج (تمت مراجعته في Blesa J) وآخرون.36).
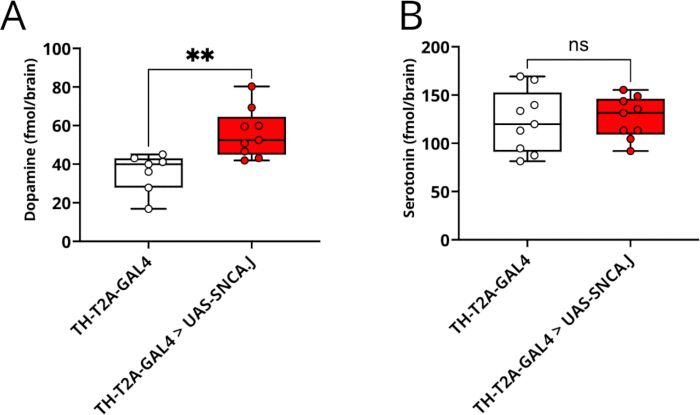
الشكل 3: تقدير كمية مستويات الدوبامين والسيروتونين في نموذج مرض باركنسون باستخدام ذبابة Drosophila عن طريق تقنية HPLC-ECD. مستويات الدوبامين (A) والسيروتونين (B) في أنسجة الدماغ الكاملة، معبراً عنها بـ fmol/brain، في ذباب المجموعة الضابطة (TH-T2A-GAL4، حيث n = 7 في A و n = 9 في B) وذباب نموذج مرض باركنسون (TH-T2A-GAL4 > UAS-SNCA.J، حيث n = 9). في هذا النموذج، يتم التعبير المفرط بشكل انتقائي عن تسلسل α-synuclein البشري المُحسَّن الكودون (SNCA.J) في العصبونات الدوبامينية تحت تحكم المحرك TH-T2A-GAL4. تُعرض البيانات على شكل مخططات الصندوق والشوارب (الوسيط، والمدى الربيعي، والحد الأدنى والأقصى) مع تراكب نقاط البيانات الفردية، حيث تمثل كل نقطة مكرراً بيولوجياً واحداً (n) يتكون من 5 أدمغة مجمعة. تم تحديد الدلالة الإحصائية بواسطة اختبار t-test غير المزدوج (**p < 0.01، ns تعني غير دال إحصائياً). يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
المناقشة
يُعد الكروماتوغرافيا السائلة عالية الأداء (HPLC) تقنية فصل قابلة للتخصيص بدرجة عالية. وبناءً على ذلك، يمكن تعديل العديد من خطوات هذا البروتوكول، وتعتمد النتائج الموثوقة على الاهتمام الدقيق واتساق هذه التعديلات. تحدد القطبية النسبية للطور الساكن والطور المتحرك نمط الفصل: حيث يقرن الطور العادي طوراً ساكناً قطبياً مع طور متحرك غير قطبي، بينما يقرن الطور المعكوس طوراً ساكناً غير قطبي مع طور متحرك قطبي. وعادةً ما يستخدم تحليل الأمينات الحيوية في الأنسجة البيولوجية ظروف الطور المعكوس. استخدمت هذه الدراسة طوراً متحركاً من سترات الأسيتات مع الميثانول كمذيب رئيسي؛ ومع ذلك، تم إجراء قياسات مماثلة بنجاح باستخدام منظم فوسفات مع الأسيتونيتريل كمذيب22,26,35. وبالتالي، يمكن أن يتغير تركيب المنظم اعتماداً على دقة القمة وشكلها المطلوبين. ومن المرجح أن يؤدي تغيير تركيب الطور المتحرك إلى تغيير أوقات الشطف37، مما قد يتسبب في تداخل القمم، وهو ما يجعل التحديد الكمي صعباً أو مستحيلاً. ولحل هذه المشكلات، تُعد تغييرات pH الحل الأكثر فعالية لأن تفاعل المادة المحللة مع العمود يعتمد بشكل كبير على قيمة pKa الخاصة بها38.
يمكن أن تتعرض الأمينات للتحلل التأكسدي، لذا فإن جمع الأنسجة ومعالجتها يمثلان نقطتين هامتين في البروتوكول. ويعد جمع العينات على الثلج الجاف وحفظها في درجة حرارة -80 °C حتى وقت المعالجة خطوة بالغة الأهمية. وبمجرد تشريح العينات، يجب تجانسها بسرعة في ظروف حمضية، وهو ما يمنع تحلل الأحماض الصفراوية (BAs)30,39,40. وفي هذا السياق، قد تكون الأحماض الأخرى مفيدة في حال كان الوصول إلى PCA محدوداً. كما يمكن استخدام مزيج من حمض الفورميك، وهو بديل مؤكسد غير متفجر لـ PCA، والميثانول في عملية الاستخلاص؛ ومع ذلك، فإننا لم نختبر ذلك في عينات دماغ Drosophila41.
يحدد اختيار الكاشف ما يمكن قياسه ومستوى الحساسية؛ وتشمل الخيارات الشائعة كواشف الأشعة فوق البنفسجية/المرئية، والفلورية، ومطياف الكتلة، حيث يتناسب كل منها مع خصائص تحليلية ومتطلبات حساسية مختلفة. ويعد الكشف الكهروكيميائي مناسباً بشكل خاص للكاتيكولامينات والإندولامينات مثل DA و5-HT، والتي تتأكسد مباشرة عند القطب العامل لتوليد تيار يتناسب مع تركيزها. وقد ذُكر أن ECD تقنية أبسط وأكثر دقة مقارنة بطرق الكشف البديلة مثل الكشف الفلوري والكشف بالأشعة فوق البنفسجية، واللذان يتطلبان غالباً خطوات أكثر قبل تحليل العينات، مما يجعلهما أكثر تعقيداً أو استهلاكاً للوقت42,43. ويوفر HPLC-ECD حساسية فائقة حيث يمكنه الكشف عن المواد التحليلية في العينات البيولوجية بتركيزات فيمتومولارية44. ونظراً لأن دماغ Drosophila الواحد يوفر كمية صغيرة جداً من الأنسجة، فإن هذا المستوى من الحساسية يعد ضرورياً. ومن الأهمية بمكان أن HPLC-ECD يسمح أيضاً بالتقدير الكمي المتزامن لعدة أمينات بيوجينية من عينة واحدة، مما يعني إمكانية الحصول على الملف الكامل للمونوامينات في تحضير الجهاز العصبي المركزي لـ Drosophila في عملية تحليلية واحدة.
تتسم هذه الطريقة بوجود قيود متأصلة تحدد نطاق تطبيقها. فبينما تتمتع هذه الطريقة بحساسية عالية، فإن تقدير كمية BA من عينات Drosophila يتطلب تجميع الأدمغة؛ لذا، لم يتم الإبلاغ عن إمكانية الكشف في دماغ واحد، كما هو الحال في مقاربات أخرى45. ومن العيوب الأخرى تلوث القطب الكهربائي (electrode fouling)، والذي قد يحدث بمرور الوقت نتيجة تشكل طبقة عازلة رقيقة من النواتج الثانوية للأكسدة على السطح، مما يؤثر على الحساسية ويؤدي إلى انزياح الإشارة46. ويظهر هذا بوضوح في نتائجنا عند استخدام جهد أكسدة أعلى (الشكل 2). ولتدارك هذه التغيرات، يمكن أن يكون تكرار عمليات الحقن القياسية بعد عدة تشغيلات مفيداً. كما يجب تكرار عمليات الحقن القياسية في كل مرة يتم فيها إجراء تغيير في الطور المتحرك أو جهد الكشف لحساب أي انزياحات في القمم المرصودة. ويمكن أن يساعد تنظيف القطب الكهربائي بشكل دوري في حل هذه المشكلة. ومن العيوب الأخرى أن تقنية HPLC-ECD توفر قياساً إجمالياً ثابتاً لمحتوى الأمين المتكامل عبر الأنسجة المقدمة للتحليل، فهي لا تقدم معلومات حول مكان تواجد هذه الأمينات في الدماغ، ولا حول المساهمات النسبية لمجموعات عصبية محددة. كما أن المركبات غير النشطة كهربائياً مثل GABA والغلوتامات لا يمكن الكشف عنها في ظروف ECD القياسية وتتطلب تحاليل منفصلة. ولعل الأمر الأكثر أهمية هو أن تقنية HPLC-ECD هي طريقة مستهدفة، حيث لا يمكن استخدامها لتحديد جزيئات مجهولة قد تكون مرتبطة بنمط ظاهري سلوكي لأنها تعتمد كلياً على مقارنة أزمنة الاحتجاز بمعايير معروفة ومحددة بدقة. أما بالنسبة للاكتشاف غير المستهدف للمتلازمات الكيميائية العصبية للسلوك، فإن تقنيات مثل LC-MS/MS ستكون أكثر ملاءمة، ولكن بتكلفة أعلى.
ضمن هذه الحدود، تعالج تقنية HPLC-ECD مجموعة محددة وذات مغزى بيولوجي من الأسئلة في نماذج الاضطرابات في Drosophila . حيث يمكنها تحديد ما إذا كان النمط الجيني أو العلاج يغير مستويات الأمينات في الحالة المستقرة، وما إذا كانت هذه التغييرات انتقائية لنظام ناقل عصبي واحد أو تؤثر على ملف المونوامينات بشكل أوسع. كما يمكنها تتبع التغيرات الكيميائية العصبية عبر المراحل التنموية أو تقدم المرض، مما يوفر دليلاً على الحالات الكيميائية الحيوية السابقة للأعراض التي تسبق الأنماط الظاهرية السلوكية القابلة للكشف47. وهي مناسبة أيضاً لتقييم ما إذا كان التدخل الدوائي أو الجيني يؤدي إلى تطبيع أو تجاوز أو فشل في إنقاذ نقص الأمينات في نموذج معين26. إن معالجة أسئلة مثل المرحلة التي يتحول فيها كل أمين، وما إذا كان إصلاح نظام واحد يؤدي إلى اضطراب نظام آخر، وما إذا كان الاضطراب التنموي يترك أثراً كيميائياً عصبياً دائماً، هو بالضبط ما صُممت من أجله طريقة تحليل الأمينات المتعددة ذات الحساسية العالية والقائمة على العينات الإجمالية. ومن خلال استخدامها جنباً إلى جنب مع المقاييس السلوكية والأدوات الجينية المتاحة في Drosophila، توفر تقنية HPLC-ECD طبقة كيميائية حيوية كمية توسع بشكل كبير النطاق التفسيري لنماذج الاضطرابات هذه.
الإفصاحات
يعلن المؤلفون عدم وجود تضارب في المصالح.
شكر وتقدير
تم دعم هذا العمل من خلال منحة المعاهد الوطنية للصحة R00NS133470 (S.H.). يقع المحتوى تحت مسؤولية المؤلفين وحدهم ولا يمثل بالضرورة الآراء الرسمية للمعاهد الوطنية للصحة. كما يحظى R.V.Z بدعم من Subvención a la Instalación en la Academia (SIA) N°85250142، ويحظى J.M.C بدعم من FONDECYT 1231556، الوكالة الوطنية للبحث والتطوير، تشيلي.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| (+-) Octopamine Hydrochloride | Sigma Aldrich | 770-05-8 | |
| وحدة ترشيح 500 mL | Thermo Scientific | FB12566504 | غشاء aPES بمسامية 0.2 um وقطر 75 mm |
| حمض الخليك الثلجي | Fisher Scientific | 64-19-7 | |
| حمض الستريك اللامائي | USB | 77-92-9 | |
| برنامج Clarity Chromatography | Data Apex | Version 10.1 | |
| محول بيانات Colibrick | Data Apex | محول A/D | |
| Dopamine Hydrochloride | Sigma Aldrich | 62-31-7 | |
| ملقط Dumont #5 (Dumoxel Biology) | Fine Science Tools | 11252-30 | ملقط تشريح |
| EDTA, Disodium Salt, Dihydrate, Crystal (2Na-EDTA) | J.T Baker | 6381-92-6 | |
| EICOMPAK-5ODS | Eicom | 680.060.00 | عمود فصل بالطور المعكوس |
| ماء EMD Milipore Synergy UV-R فائق النقاء (النوع 1) | Milipore | ||
| حقنة Hamilton سعة 25ul (22s/2" /3) | Hamilton | 80465 | |
| HTEC-600 | Eicom | جهاز HPLC | |
| حمض الهيدروكلوريك | Sigma Aldrich | 7647-01-0 | |
| مناديل ورقية للأنسجة خفيفة الاستخدام | VWR | 82003-820 | |
| ميثانول بدرجة HPLC | Fisher Scientific | 67-56-1 | مرشح بمقدار 0.2 ميكرون |
| حمض البيركلوريك، 70% في الماء | Fisher Scientific | AC424032500 | يستخدم لتحضير 0.2 N PCA |
| Serotonin Hydrochloride 98% | Fisher Scientific | 153-98-0 | |
| Sodium 1-octanesulfonate hydrate، بدرجة HPLC، +99% | Thermo Scientific | 5324-84-5 | |
| خلات الصوديوم، ثلاثي الهيدرات، بلورات | J.T Baker | 6131-90-4 | |
| جهاز التنظيف بالموجات فوق الصوتية Sonicator 1510 Bransonic | Branson | Model #: 1510R-MT | جهاز سونيكيتور |
| معالج الموجات فوق الصوتية (سونيكيتور) | Fisherbrand | Model FB50 | مع مسبار CL18 |
المراجع
- Barron AB, Søvik E, Cornish JL. The roles of dopamine and related compounds in reward-seeking behavior across animal phyla. Front Behav Neurosci. 2010;4:163.
- Cardozo Pinto DF, et al. Opponent control of reinforcement by striatal dopamine and serotonin. Nature. 2025;639(8053):143-152.
- Jiang Y, et al. Monoamine neurotransmitters control basic emotions and affect major depressive disorders. Pharmaceuticals (Basel). 2022;15(10):1203.
- Swallow JG, Bubak AN, Grace JL. The role of monoamines in modulating behavior. Curr Zool. 2016;62(3):253-255.
- Ramesh S, Arachchige ASPM. Depletion of dopamine in Parkinson's disease and relevant therapeutic options: A review of the literature. AIMS Neurosci. 2023;10(3):200-231.
- Elgueta-Reyes M, Hidalgo S, Campusano JM. Beyond vertebrates: Drosophila melanogaster as a model to study negative symptoms of schizophrenia. Front Psychiatry. 2025;16:1622281.
- Kasture AS, Hummel T, Sucic S, Freissmuth M. Big lessons from tiny flies: Drosophila melanogaster as a model to explore dysfunction of dopaminergic and serotonergic neurotransmitter systems. Int J Mol Sci. 2018;19(6):1788.
- Owald D, Lin S, Waddell S. Light, heat, action: Neural control of fruit fly behaviour. Philos Trans R Soc Lond B Biol Sci. 2015;370(1677):20140211.
- Rosikon KD, Bone MC, Lawal HO. Regulation and modulation of biogenic amine neurotransmission in Drosophila and Caenorhabditis elegans. Front Physiol. 2023;14:970405.
- Pandey UB, Nichols CD. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 2011;63(2):411-436.
- Duffy JB. GAL4 system in Drosophila: A fly geneticist's Swiss army knife. Genesis. 2002;34(1-2):1-15.
- Feany MB, Bender WW. A Drosophila model of Parkinson's disease. Nature. 2000;404(6776):394-398.
- Narwal S, Singh A, Tare M. Analysis of α-syn and parkin interaction in mediating neuronal death in Drosophila model of Parkinson's disease. Front Cell Neurosci. 2024;17:1295805.
- Park J, et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 2006;441(7097):1157-1161.
- Aryal B, Lee Y. Disease model organism for Parkinson disease: Drosophila melanogaster. BMB Rep. 2019;52(4):250-258.
- Clark IE, et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 2006;441(7097):1162-1166.
- Park S, Kozhushko N, Wight TH, Whitworth AJ. Insights into PINK1/Parkin function and dysfunction from Drosophila models. Biochem J. 2025;483(1):BCJ20253459.
- Mohite GM, et al. Parkinson's disease associated α-synuclein familial mutants promote dopaminergic neuronal death in Drosophila melanogaster. ACS Chem Neurosci. 2018;9(11):2628-2638.
- Ordonez DG, Lee MK, Feany MB. α-Synuclein induces mitochondrial dysfunction through spectrin and the actin cytoskeleton. Neuron. 2018;97(1):108-124.e6.
- Eyles D, Feldon J, Meyer U. Schizophrenia: Do all roads lead to dopamine or is this where they start? Evidence from two epidemiologically informed developmental rodent models. Transl Psychiatry. 2012;2(2):e81.
- Calcagno B, Eyles D, van Alphen B, van Swinderen B. Transient activation of dopaminergic neurons during development modulates visual responsiveness, locomotion and brain activity in a dopamine ontogeny model of schizophrenia. Transl Psychiatry. 2013;3(1):e206.
- Hidalgo S, et al. The behavioral and neurochemical characterization of a Drosophila dysbindin mutant supports the contribution of serotonin to schizophrenia negative symptoms. Neurochem Int. 2020;138:104753.
- Hidalgo S, Campusano JM, Hodge JJL. Assessing olfactory, memory, social and circadian phenotypes associated with schizophrenia in a genetic model based on Rim. Transl Psychiatry. 2021;11(1):292.
- Hidalgo S, Campusano JM, Hodge JJL. The Drosophila orthologs of the schizophrenia-associated CACNA1A and CACNA1B voltage-gated calcium channels regulate memory, sleep and circadian rhythms. Neurobiol Dis. 2021;155:105394.
- Shao L, et al. Schizophrenia susceptibility gene dysbindin regulates glutamatergic and dopaminergic functions via distinctive mechanisms in Drosophila. Proc Natl Acad Sci U S A. 2011;108(46):18831-18836.
- Zárate RV, et al. An early disturbance in serotonergic neurotransmission contributes to the onset of Parkinsonian phenotypes in Drosophila melanogaster. Cells. 2022;11(9):1544.
- Nakao K, et al. 5-HT2A receptor dysregulation in a schizophrenia relevant mouse model of NMDA receptor hypofunction. Transl Psychiatry. 2022;12(1):168.
- Zhou W, et al. DISC1 mutant macaques capture behavioral and neural hallmarks of psychiatric disease. Natl Sci Rev. 2026;13(8):nwag200.
- Chen A, et al. Dispensable, redundant, complementary, and cooperative roles of dopamine, octopamine, and serotonin in Drosophila melanogaster. Genetics. 2013;193(1):159-176.
- Plenis A, Olędzka I, Kowalski P, Miękus N, Bączek T. Recent trends in the quantification of biogenic amines in biofluids as biomarkers of various disorders: a review. J Clin Med. 2019;8(5):640.
- Fredj Z, Sawan M. Advanced nanomaterials-based electrochemical biosensors for catecholamines detection: challenges and trends. Biosensors (Basel). 2023;13(2):211.
- Hori A, Nitta T, Inamori Kichiro, Kanoh H, Kuraishi T. High-throughput single-fly LC-MS/MS for quantitative profiling of biogenic amines in Drosophila. PLoS One. 2026;21(1):e0341188.
- Davla S, et al. An LC-MS/MS method for simultaneous analysis of up to six monoamines from brain tissues. J Chromatogr B. 2023;1216:123604.
- Chouhan AK, et al. Uncoupling neuronal death and dysfunction in Drosophila models of neurodegenerative disease. Acta Neuropathol Commun. 2016;4(1):62.
- Molina-Mateo D, et al. Characterization of a presymptomatic stage in a Drosophila Parkinson's disease model: unveiling dopaminergic compensatory mechanisms. Biochim Biophys Acta Mol Basis Dis. 2017;1863(11):2882-2890.
- Blesa J, et al. Compensatory mechanisms in Parkinson's disease: circuits adaptations and role in disease modification. Exp Neurol. 2017;298(Pt B):148-161.
- Snyder LR, Quarry MA, Glajch JL. Solvent-strength selectivity in reversed-phase HPLC. Chromatographia. 1987;24(1):33-44.
- Lewis JA, et al. Computer simulation for the prediction of separation as a function of pH for reversed-phase high-performance liquid chromatography: I. Accuracy of a theory-based model. J Chromatogr A. 1992;592(1):183-195.
- Chan EC, Wee PY, Ho PC. Evaluation of degradation of urinary catecholamines and metanephrines and deconjugation of their sulfoconjugates using stability-indicating reversed-phase ion-pair HPLC with electrochemical detection. J Pharm Biomed Anal. 2000;22(3):515-526.
- Bicker J, Fortuna A, Alves G, Falcão A. Liquid chromatographic methods for the quantification of catecholamines and their metabolites in several biological samples: a review. Anal Chim Acta. 2013;768:12-34.
- Miękus N, et al. Comparison of three extraction approaches for the isolation of neurotransmitters from rat brain samples. Int J Mol Sci. 2018;19(6):1560.
- Van Dam D, Vermeiren Y, Aerts T, De Deyn PP. Novel and sensitive reversed-phase high-pressure liquid chromatography method with electrochemical detection for the simultaneous and fast determination of eight biogenic amines and metabolites in human brain tissue. J Chromatogr A. 2014;1353:28-39.
- Han S, et al. A sensitive HPLC-ECD method for detecting serotonin released by RBL-2H3 cells stimulated by potential allergens. Anal Methods. 2015;7(20):8918-8924.
- Guiard BP, Gotti G. The high-precision liquid chromatography with electrochemical detection (HPLC-ECD) for monoamines neurotransmitters and their metabolites: a review. Molecules. 2024;29(2):496.
- Fang H, Vickrey TL, Venton BJ. Analysis of biogenic amines in a single Drosophila larva brain by capillary electrophoresis with fast-scan cyclic voltammetry detection. Anal Chem. 2011;83(6):2258-2264.
- Hanssen BL, Siraj S, Wong DKY. Recent strategies to minimise fouling in electrochemical detection systems. Rev Anal Chem. 2016;35(1):1-28.
- Meissner WG. When does Parkinson's disease begin? From prodromal disease to motor signs. Rev Neurol (Paris). 2012;168(11):809-814.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً