يوفر هذا البروتوكول دليلاً للتصوير المجهري confocal الحي لديناميكيات الأنيبيبات الدقيقة باستخدام علامات الأنيبيبات الدقيقة الفلورية في العصبونات الحسية ليرقات ذبابة Drosophila.
مقالة منهجية
تصوير ديناميكيات الأنيبيبات الدقيقة In Vivo في الزوائد الشجرية الحسية لـ Drosophila
* These authors contributed equally
في هذه المقالة
ملخص
الملخص
تقع العصبونات الحسية من الفئة الرابعة في يرقات Drosophila مباشرة تحت القشيرة، وتتميز بتفرعات شجيرية عالية التفرع تتوسع بشكل متماثل في بعدين مع نمو اليرقات. يتم تحفيز نمو هذه التفرعات بواسطة عمليات عشوائية تشمل نمو أطراف التفرعات الشجيرية وانكماشها وتوقفها. ولاختبار الفرضية القائلة بأن ديناميكيات الأطراف مدفوعة بديناميكيات الأنيبيبات الدقيقة، تم تطوير بروتوكولات لتصوير الأنيبيبات الدقيقة المسمى فلورياً داخل الشجيرات. تتيح هذه الطريقة تصور ديناميكيات الأنيبيبات الدقيقة في النهايات الشجيرية الدقيقة للعصبونات الحسية من الفئة الرابعة باستخدام المجهر البؤري. وقد صُممت هذه الطريقة للحفاظ على شكل التفرعات الشجيرية أثناء التصوير مع السماح بتصور الأنيبيبات الدقيقة جنباً إلى جنب مع وسم غشائي. تصف هذه المخطوطة الإجراءات المستخدمة لتحضير يرقات Drosophila للتصوير الحي وتصور الأنيبيبات الدقيقة المسمى فلورياً في الشجيرات. وبناءً على ذلك، يوفر هذا البروتوكول نهجاً لفحص سلوك الأنيبيبات الدقيقة في النهايات الشجيرية الدقيقة مع بقائه متوافقاً مع الوسم الغشائي المشترك.
المقدمة
تُعد العصبونات خلايا شديدة الاستقطاب يحدد هيكلها الخلوي بنيتها المعمارية. وتوفر الأنيبيبات الدقيقة، وهي أحد مكونات الهيكل الخلوي العصبي، الدعم البنيوي وتعمل كمسارات لنقل الشحنات لمسافات طويلة1,2. ويُعد الهيكل الخلوي المكون من الأنيبيبات الدقيقة أمراً حاسماً لتطور التغصنات3. تنمو التغصنات بشكل عشوائي من خلال عملية تشمل التفرع والاستطالة والتقلص4. وتُعد عصبونات التشجر التغصني (da) في يرقات Drosophila نظاماً نموذجياً قوياً in vivo لدراسة التشكل المورفولوجي للتغصنات. وتُصنف هذه العصبونات الحسية إلى أربع فئات (I-IV) بناءً على زيادة تعقيد التغصنات3,5. وتمتلك عصبونات da من الفئة IV تغصنات معقدة وشديدة التفرع، وتعمل كمستقبلات ألم متعددة الوسائط6,7,8. وتُشكل تغصنات هذه العصبونات حقول استقبال نمطية على طول القطع البطنية وتقع مباشرة تحت القشيرة الشفافة9,10. هذا التشريح، إلى جانب القابلية للتعديل الوراثي في Drosophila، يجعل عصبونات da من الفئة IV نظاماً مناسباً لتصور تطور التغصنات in vivo بدقة مكانية وزمنية عالية. ومع نمو التغصنات أثناء التطور، تنتقل نهاياتها عشوائياً بين حالات النمو والتقلص والتوقف11. ويتشارك نمو النهايات وتقلصها العديد من التشابهات الحركية مع نمو وتقلص الأنيبيبات الدقيقة12. لذا، فإن تصور ديناميكيات الأنيبيبات الدقيقة في هذه الخلايا يمثل أهمية كبيرة.
تتمثل إحدى الطرق الشائعة لتصوير ديناميكيات الأنيبيبات الدقيقة في الخلايا الحية، بما في ذلك تلك الموجودة في يرقات Drosophila، في تصوير البروتينات المرتبطة بالنهايات والموسومة فلوريسنتيًا مثل EB1 وEB313,14,15,16,17,18. ومع ذلك، قد يكون تفسير إشارات EB-GFP غامضًا؛ فعلى سبيل المثال، يمكن لنقطة EB-GFP تتحرك بعيدًا عن جسم الخلية في الاتجاه القاصي أن تمثل نهاية موجبة لأنيبيب دقيق ينمو نحو الخارج، أو نهاية موجبة لأنيبيب دقيق ينمو نحو الداخل وينزلق في الاتجاه القاصي. وعلى الرغم من أن EB-GFP يوسم بشكل أساسي النهايات الموجبة للأنيبيبات الدقيقة النامية، إلا أنه يمكنه أيضًا توسيم النهايات السالبة النامية19، مما يؤدي إلى المزيد من الغموض. ويمكن أن يقلل التصوير المباشر للأنيبيبات الدقيقة من هذه الالتباسات.
هناك نهج بديل لـ EB-GFP وهو الوسم المباشر للأنابيب الدقيقة باستخدام GFP-tubulin20,21. ومع ذلك، فإن tubulin الفلوري يوسم التغصنات القريبة بقوة22، لكنه يفشل في وسم التغصنات البعيدة23. وتتمثل صعوبة أخرى في استخدام tubulin الفلوري في أن التركيز العالي لـ tubulin الذائب يجعل من الصعب تمييز الأنابيب الدقيقة الفردية في الاستطالات الضيقة مثل التغصنات الطرفية. لذا، لا يزال تصوير ديناميكيات الأنابيب الدقيقة في الخلايا العصبية السليمة تحت الظروف الفسيولوجية العادية يمثل تحدياً.
الـ ذبابة الفاكهة (Drosophila) لقد تم اعتبار البروتين المرتبط بالأنيبيبات الدقيقة (MAP) Jupiter، وهو نظير بنيوي لكل من بروتين Tau وبروتين MAP2 وبروتين MAP4 في الثدييات، تُستخدم لوسم الأنيبيبات الدقيقة في ذبابة الفاكهة (Drosophila) الأنسجة، بما في ذلك المبيض والأجنة24في التغصنات من الفئة الرابعة (class IV)، استُخدم كل من mCherry-Jupiter وsfGFP-Jupiter لقياس كمية الأنابيب الدقيقة في الفروع القريبة.22,25,26يصف هذا البروتوكول طريقة للتصوير الحي تتيح المراقبة عالية الدقة وبفاصل زمني لسلوك الأنيبيبات الدقيقة العصبية في الزوائد الشجرية القاصية لـ ذباب الفاكهة (Drosophila) عصبونات الفئة الرابعة (class IV) باستخدام سلالات ذباب تعبر عن نطاق ربط التيوبولين المسمى فلورياً لبروتين Jupiter.
البروتوكول
استخدمت هذه الدراسة ذبابة الفاكهة Drosophila melanogaster، وهي نموذج من اللافقاريات لا يتطلب موافقة مؤسسية لأخلاقيات التعامل مع الحيوانات. الأدوات المستخدمة في البروتوكول مدرجة في جدول المواد.
1. توليد سلالات الذباب التجريبية
- قم بإجراء تهجين للحصول على السلالة الأبوية المطلوبة. استخدم النظام الثنائي GAL4/UAS لتحفيز تعبير mNeonGreen (mNG)-Jupiter في عصبونات التشجر الشجيري (da) من الفئة IV التي تعبر عن GAL4 تحت محفز ppk.
- قم بتهجين إناث عذارى من سلالة UAS-mNG-Jupiter متماثلة الزيجات مع ذكور من سلالة ppk-GAL4; CD4tdTomato متماثلة الزيجات. احصل على نسل F1 يحمل كلاً من ppk-GAL4; CD4tdTomato و UAS-mNG-Jupiter.
ملاحظة: يعبر نسل F1 الذي يحمل كلاً من ppk-GAL4; CD4tdTomato و UAS-mNG-Jupiter عن mNG و CD4tdTomato بقوة في عصبونات da من الفئة IV. قم بإجراء التصوير باستخدام يرقات مشتقة من ثلاث عمليات تهجين جيني مستقلة على الأقل، مع تصوير ست يرقات كحد أدنى لكل عملية تهجين. - احتفظ بالتهجين في زجاجة تربية للتزاوج، مع وضع مسحة من معجون الخميرة على الجدار. يتم التحضين عند 25 °C لمدة 2–3 أيام.
ملاحظة: يؤدي التغذية بالخميرة إلى تعزيز وضع البيض. - قم بتحضير معجون الخميرة بوضع ملعقة من الخميرة في بيكر صغير وإضافة بضع قطرات من الماء. اخلط المكونات جيداً باستخدام ملعقة مسطحة (spatula) حتى يصل المعجون إلى قوام شبه صلب، مع إضافة الماء قطرة بقطرة حسب الحاجة.
- انقل الذباب إلى زجاجة تربية جديدة تحتوي على معجون خميرة طازج يومياً.
ملاحظة: تأكد من أن معجون الخميرة ليس ليناً جداً ولا سائلاً جداً؛ فإذا أصبح ليناً للغاية، قد يعلق الذباب فيه. لمزيد من التفاصيل المنهجية، راجع Hales et al.27 و Roote and Prokop28.
2. وضع البيض على أطباق آغار العنب، وجمع البيض، وتحديد مراحل اليرقات
- قم بتحضير 0.5 L تقريبًا من وسط أغار العنب عن طريق خلط 376 mL من الماء المقطر، و126 mL من عصير العنب، و15 g من الأغار، و6 g من السكروز في دورق سعة 1 L صالح للاستخدام في الميكروويف.
- سخن الخليط في الميكروويف لمدة 3–5 min، مع التحريك كل 1 min حتى يذوب الأغار تمامًا. اترك الخليط ليبرد قليلاً، ثم أضف 10 mL من الإيثانول و5 mL من حمض الأسيتيك.
- امزج المكونات جيداً وصب الوسط في أطباق بتري بقطر 60 mm لتحضير أطباق أغار العنب. قم بتحضير الأطباق مسبقاً، وخزنها عند 4 °C عن طريق تكديسها مقلوبة ولفها في أغلفة أطباق بتري، واستخدمها في غضون أسبوعين. قم بتدفئة الأطباق مسبقاً حتى تصل إلى درجة حرارة الغرفة قبل الاستخدام.
- انقل ما يقرب من 150 ذبابة، تتكون من 50 ذكراً و100 أنثى، من زجاجة الحفظ إلى قفص وضع البيض.
- غطِ قفص وضع البيض بطبق أغار عنب بقطر 60 mm يحتوي على مسحة من عجينة الخميرة.
- اترك الذباب يضع البيض عند 25 °C لمدة 2 h على طبق أغار العنب الذي يحتوي على عجينة الخميرة. استبدل الطبق بطبق أغار عنب جديد يحتوي على عجينة الخميرة واترك الذباب يضع البيض لمدة 2 h أخرى.
- قدم طبق أغار عنب ثالث بقطر 60 mm يحتوي على عجينة الخميرة واترك الذباب يضع البيض لمدة 2 h.
- استخدم الطبق الثالث كطبق تجريبي وتخلص من الطبقين الأولين لتقليل التباين في عمر الأجنة.
ملاحظة: غالباً ما تحتوي عملية جمع البيض الأولية على أجنة في مراحل نمو مختلفة لأن إناث Drosophila يمكنها الاحتفاظ بالبيوض المخصبة في الجهاز التناسلي لعدة ساعات قبل وضعها. ويساعد التخلص من الأطباق الأولية في الحصول على بيوض أكثر تزامناً في العمر. - لإجراء التصوير المرحلي بعد وضع البيض (AEL)، اترك الأجنة في الأطباق التجريبية تنمو عند 25 °C حتى الوصول إلى المرحلة المطلوبة: المرحلة 1، 24 h؛ المرحلة 2، 48 h؛ المرحلة 3، 72 h؛ والمرحلة 4، 96–120 h.
3. تنظيف اليرقات
- اغسل اليرقات بـ 5 mL من محلول السكروز بتركيز 5%، يليه 5 mL من dH₂O، لإزالة بقايا الخميرة من السطح ومنع الجفاف.
- انقل اليرقات، عادةً ثلاث أو أربع يرقات، إلى غطاء طبق زراعة خلايا مقاس 35 mm باستخدام فرشاة رسم مقاس 3/0. جفف اليرقات باستخدام منديل مختبري لإزالة المياه الزائدة.
4. التخدير
- نظف اليرقات وجففها قبل التخدير.
- جهز إعدادات التخدير مسبقاً (الشكل 1). ضع طبق زراعة الخلايا داخل حاوية من الورق المقوى لتقليل حركة الهواء فوق الطبق وتقليل اضطراب تخدير الإيزوفلورين.
تنبيه: الإيزوفلورين مخدّر متطاير. تعامل مع الإيزوفلورين واستخدمه مع تهوية مختبرية مناسبة ووفقاً لإجراءات السلامة الكيميائية المؤسسية. قم بتثبيت اليرقات عن طريق إضافة الحجم المقاس من الإيزوفلورين إلى أنبوب التخدير المثبت بشريط لاصق داخل طبق زراعة خلايا مقاس 35 مم يعمل كخزان للتبخير. - ضع غطاء طبق زراعة الخلايا الذي يحتوي على اليرقات النظيفة والجافة فوق طبق زراعة الخلايا.
- خدر اليرقات لمدة 2–3 min.
ملاحظة: يعتمد حجم الإيزوفلورين ومدة التخدير على مرحلة اليرقة وعدد اليرقات. حدد الكمية تجريبياً. على سبيل المثال، استخدم 10–20 µL من الإيزوفلورين لمدة 2 min لتخدير ثلاث يرقات بعمر 72 h لمدة 30 min تقريباً. استخدم 5 µL من الإيزوفلورين لكل يرقة في الدقيقة كجرعة أولية للتثبيت، بغض النظر عن مرحلة اليرقة.
5. التثبيت
- اصنع إطاراً مستطيلاً أو دائرياً باستخدام الفازلين على شريحة مجهر زجاجية نظيفة، مع ترك فجوة صغيرة في أحد الأركان (الشكل 1C). استخدم موزع الحناء لرسم الإطار على الشريحة.
- انقل اليرقات المخدرة إلى الإطار باستخدام فرشاة رسم. ثبّت اليرقات بحيث يكون الجانب الظهري للأعلى في قطرة من زيت Halocarbon Oil 700.
- ضع غطاء شريحة رقم 1.5 فوق اليرقة. اضغط برفق حتى يسد الفازلين الفجوة بين غطاء الشريحة والشريحة وتصبح اليرقة مسطحة قليلاً مقابل شريحة المجهر.
- قم بتصوير العينة فوراً لمدة تصل إلى 30-45 min من خطوة النقل الموضحة في الخطوة 5.2. توقف عن التصوير إذا لوحظ حدوث بثور أو تلف عصبي، بما في ذلك تكسر التغصنات، في القناة الغشائية؛ واستخدم جرعة أقل من المخدر.
ملاحظة: تأكد من عدم وجود فقاعات في زيت Halocarbon Oil بعد وضع غطاء الشريحة. إن تجنب الفقاعات ضروري للحصول على فيديوهات ديناميكية عالية الجودة ولتقليل الانزياح. ولتقليل تكون الفقاعات الهوائية، اترك فجوة صغيرة في أحد أركان إطار الفازلين للسماح للهواء بالخروج أثناء وضع غطاء الشريحة. قم بسد الفجوة باستخدام فرشاة رسم دقيقة إذا لزم الأمر.
6. المجهرية واكتساب الصور
- قم بإجراء التصوير الحي لعينات اليرقات باستخدام مجهر بؤري مسحي ذو قرص دوار (spinning-disk confocal microscope) مجهز بثقب دبوسي (pinhole) بحجم 50 µm ونظام تركيز مثالي (perfect-focus system).
- اضبط خطوط الليزر 488 nm و 561 nm على 30% من القدرة القصوى، بافتراض أن الليزرات بقدرة 100 mW، وذلك لتصوير وسم الأنيبيبات الدقيقة، مثل mNG-Jupiter، ووسم الغشاء، CD4tdTomato.
- اضبط زمن التعرض على 200 ms. التقط الصور باستخدام كاميرا sCMOS بمستشعرات حجمها 6.5 µm وبرنامج الحصول على الصور المرتبط بها.
- احصل على جميع الصور باستخدام عدسة شيئية غاطسة في الماء بقوة 40× وفتحة عددية 1.25 وحجم بكسل 0.1614 µm.
- قم بتركيز العينة يدويًا لتحديد الأنصاف القطعية البطنية الثانية والثالثة والرابعة للسطح الظهري، حيث يمكن الوصول بسهولة إلى عصبونات الفئة IV من خلال القشيرة الشفافة.
- لكل تسجيل، احصل على مجموعة من المقاطع العرضية (z-stacks) تمتد حتى 10 µm في العمق وبخطوة قدرها 1 µm لكل مستوى. احصل على هذه المقاطع بفواصل زمنية قدرها 10 s لمدة 10 أو 15 min.
ملاحظة: ما لم ينص على خلاف ذلك، استخدم اليرقات في عمر 72 h AEL لإجراء التصوير.
7. معالجة الصور وتحليلها
- استيراد مقاطع الفيديو المكتسبة بنظام التصوير المتقطع (time-lapse) بصيغة .ND2 إلى برنامج FIJI (Fiji Is Just ImageJ) باستخدام مستورد Bio-Formats. ثم تحويل مقاطع الفيديو إلى صيغة TIFF لإجراء التحليلات اللاحقة.
- تثبيت مقاطع الفيديو لتصحيح انزياح العينة باستخدام إضافة تثبيت الصور (image stabilization plugin) مع إعدادات التحويل التآلفي (affine transformation) في برنامج FIJI.
- استبعاد مقاطع الفيديو من التحليل إذا كانت الحركة مفرطة. تُعتبر الحركة التي تتجاوز 1 µm/min مفرطة، ويجب استبعاد تلك المقاطع من التحليل. كما تُستبعد مقاطع الفيديو في حال ملاحظة التبرعم (blebbing) في قناة مؤشر الغشاء (CD4tdTomato).
- تحويل مكدسات المحور z (z-stacks) إلى سلاسل زمنية ثنائية الأبعاد عن طريق إنشاء إسقاطات ذات كثافة قصوى (maximum-intensity projections) على طول المحور z في برنامج FIJI.
- رسم مناطق اهتمام (ROIs) خطية في برنامج FIJI على طول الميزة المراد دراستها لتقدير الخصائص الديناميكية للأطراف والأنابيب الدقيقة. استخدام إضافة Multi Kymograph في برنامج FIJI لإنشاء المخططات الزمنية المكانية (kymographs). يتم إنشاء المخطط الزمني المكاني باستخدام مسح خطي بعرض 3 بكسل على طول منطقة الاهتمام، ومعالجته باستخدام إضافة Multi Kymograph في برنامج FIJI.
- استخلاص ملفات تعريف الكثافة باستخدام أداة Plot Profile مع عرض خط يبلغ 3 بكسل. إنشاء ملف CSV متعدد الأعمدة بحيث تشفر الأعمدة المتبادلة الموضع والكثافة على طول كل مسح خطي.
- تقدير كثافة الخلفية من منطقة اهتمام مطابقة في منطقة فارغة من المجال. ثم طرح كثافة الخلفية من كل إطار.
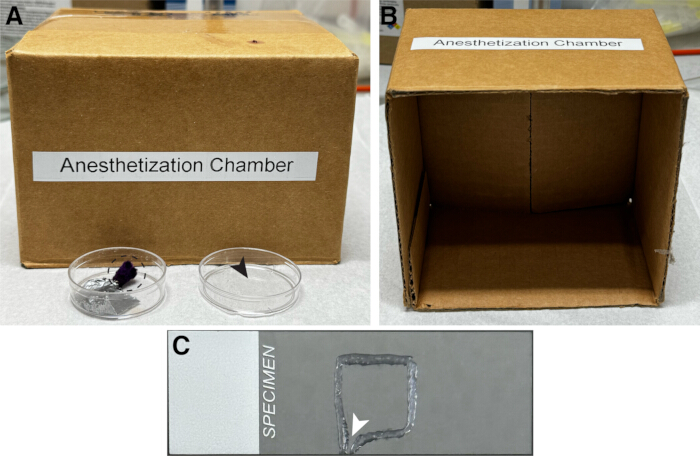
الشكل 1: مكونات تجهيزات التخدير. (A) صندوق كرتوني صغير يغطي طبق زراعة خلايا بقطر 35 mm يحتوي على عصا تخدير بالتبخير مثبتة بشريط لاصق (الدائرة المتقطعة السوداء). استُخدم غطاء طبق زراعة الخلايا لحفظ اليرقات النظيفة والجافة قبل وأثناء التخدير (رأس السهم الأسود). (B) منظر داخلي للصندوق. (C) شريحة مجهرية مع حاجب مربع من الفازلين تم تحضيره باستخدام موزع الحناء لاحتواء عينة اليرقات أثناء التصوير. تسهل الفجوة الصغيرة (رأس السهم الأبيض) إزالة الهواء أثناء وضع غطاء الشريحة. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
النتائج
باتباع البروتوكول الموصوف أعلاه، تم تصوير الأنيبيبات الدقيقة بنجاح في عصبونات التشجر الشجيري (da) من الفئة IV باستخدام mNG-Jupiter بالتزامن مع علامة الغشاء CD4tdTomato (الشكل 2A–C). وقد حددت علامة الغشاء المورفولوجيا العامة للشجرة الشجيرية، بينما قام mNG-Jupiter بتمييز المناطق التي تحتوي على الأنيبيبات الدقيقة داخل الزوائد الشجيرية. وعند النهايات البعيدة للزوائد الشجيرية الطرفية، كان تألق mNG-Jupiter ضعيفاً أو غائباً بالقرب من أطراف الزوائد الشجيرية، بينما ظل تألق CD4tdTomato قوياً في النهايات المقابلة (الشكل 2D–F).
لم تظهر التشجرات التغصنية أي اختلافات مورفولوجية واضحة مقارنة باليرقات التي تم تصويرها باستخدام واسم الغشاء وحده في دراسات سابقة11. ولتقييم ما إذا كان تعبير mNG-Jupiter قد تسبب في تشوهات مورفولوجية كمياً، تم عد عدد النهايات التغصنية في التشجرات التي تعبر عن mNG-Jupiter والتشجرات الضابطة عند 72 ساعة بعد فقس البيض (AEL). وفي ثماني خلايا من ثماني يرقات mNG-Jupiter، كان عدد النهايات في ربع واحد من التشجرة 153 ± 25 (المتوسط ± الانحراف المعياري)، مقارنة بـ 144 ± 27 (المتوسط ± الانحراف المعياري) في اليرقات الضابطة (الشكل 2G). ولم يتم اكتشاف أي فرق معنوي باستخدام اختبار Welch’s t-test (انظر شرح الشكل 2). وبناءً على ذلك، لم يؤدِ تعبير mNG-Jupiter إلى تغيير ملحوظ في عدد الفروع التغصنية.
أظهر التصوير بفاصل زمني السلوك الديناميكي لإشارة mNG-Jupiter داخل الزوائد الشجيرية النهائية. وفي التسلسل النموذجي الموضح في الشكل 3A، تغير موقع نهاية الأنيبيبات الدقيقة المحددة بـ mNG-Jupiter الساطعة بمرور الوقت. وقد رُتبت المسوحات الخطية المتتالية لإشارة mNG-Jupiter زمنياً لتصور التغيرات في موقع الأنيبيبات الدقيقة وطولها. ويظهر المخطط الزمني المكاني (kymograph) الناتج في الشكل 3B مراحل متبادلة من التمدد والانكماش للإشارة الفلورية، وهو ما يتفق مع النمو والتقلص الملحوظ للأنيبيبات الدقيقة المحددة في الزوائد الشجيرية النهائية (الفيديوهات 1 و 2). أما في الزوائد الشجيرية الأكثر سمكاً والأقرب إلى جسم الخلية، فقد حال العدد الأكبر من الأنيبيبات الدقيقة دون تصور ديناميكيات الأنيبيبات الدقيقة الفردية.
تُظهر الصور التمثيلية وتسجيلات الفاصل الزمني معاً أن البروتوكول يتيح تصور كل من المورفولوجيا التغصنية والتغيرات الديناميكية في الفلورة المرتبطة بالأنيبيبات الدقيقة في العصبونات الحسية السليمة ليرقات Drosophila. حيث يوفر واسم الغشاء مرجعاً للبنية التغصنية، بينما يسمح mNG-Jupiter بتتبع سلوك الأنيبيبات الدقيقة داخل التغصن بمرور الوقت (الشكلان 2 و3).
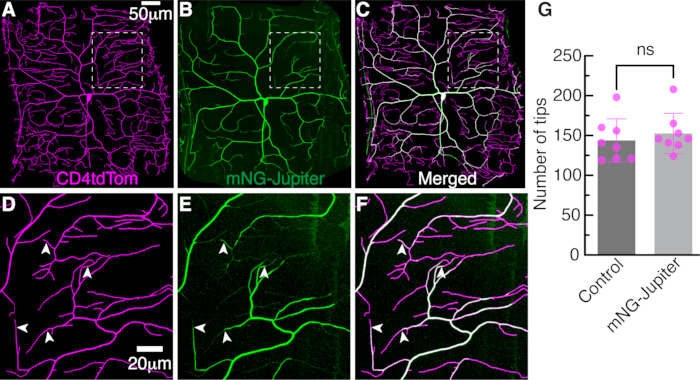
الشكل 2: الزوائد الشجيرية في عصبونات الفئة IV. التفرع الشجيري لعصبون من الفئة IV (da) تم تصويره بواسطة مجهر كونفوكال ذي القرص الدوار بعد 72 ساعة من وضع البيض (AEL). تم تصوير الأنابيب الدقيقة باستخدام نظام التعبير الثنائي GAL4/UAS. يسهل المحرك النوعي لخلايا الفئة IV وهو ppk-GAL4 (pickpocket) التعبير عن بروتين Jupiter المسمى بـ mNG (UAS-mNG-Jupiter). تم تحديد الأغشية الشجيرية عن طريق التعبير المباشر بوساطة محفز ppk لبروتين tdTomato المندمج مع علامة الغشاء CD4 (ppk-CD4tdTomato). (A) علامة الغشاء، CD4tdTomato. (B) علامة الأنابيب الدقيقة، mNG-Jupiter. (C) صورة مدمجة. (D–F) مناظر مكبرة للمناطق المحددة بمربعات بيضاء متقطعة في A-C على التوالي، توضح توزيع علامات الأنابيب الدقيقة والغشاء. تشير رؤوس السهام البيضاء إلى توزيع mNG-Jupiter في الزوائد الشجيرية الطرفية. (G) تقدير كمي لعدد أطراف الزوائد الشجيرية في العصبونات الضابطة والعصبونات التي تعبر عن mNG-Jupiter عند 72 h AEL. تمثل كل نقطة عدد الأطراف التي تم عدها في ربع واحد من عصبون واحد من يرقة متميزة. تم تحليل ما مجموعه ثمانية عصبونات من ثماني يرقات مستقلة لكل مجموعة. تمثل أشرطة الخطأ المتوسط ± SD. تمت مقارنة المجموعات باستخدام اختبار Welch's t غير المزدوج ثنائي الجانب؛ ns، غير دال إحصائياً (P > 0.05). يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
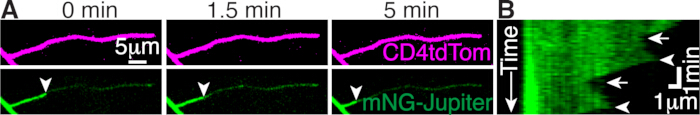
الشكل 3: ديناميكيات الأنابيب الدقيقة في تغصن طرفي. (A) ثلاث صور لتغصن طرفي يعبر عن CD4tdTomato (في الأعلى) وmNG-Jupiter (في الأسفل) عند النقاط الزمنية المحددة. تشير رؤوس السهام إلى نهاية الأنبوب الدقيق. تظهر إشارة mNG خافتة بعد إشارة الأنبوب الدقيق القوية. (B) مخطط زمن-مسافة (Kymograph) يوضح نمو وتقلص الأنابيب الدقيقة. تشير رؤوس السهام إلى مراحل النمو، وتشير السهام إلى مراحل التقلص. تم ترتيب مسوحات خطية متتالية بعرض 3 بكسل لإشارة mNG واحدة تلو الأخرى، مع زيادة الزمن في الاتجاه الهابط. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الفيديو 1: التصوير بفاصل زمني لبروتين mNG-Jupiter في عصبونات التشجر الشجيري من الفئة IV.تسلسل تصوير بفاصل زمني يظهر فلورة mNG-Jupiter في الزوائد الشجيرية من الفئة IV في يرقات Drosophila. يوضح التسلسل التغيرات في الفلورة المرتبطة بالأنيبيبات الدقيقة بمرور الوقت داخل التشجر الشجيري. تم الحصول على الصور باستخدام ظروف التصوير الحي الموضحة في البروتوكول. شريط المقياس، 20 µm. يرجى النقر هنا لتحميل هذا الملف.
الفيديو 2: التصوير بفاصل زمني لعلامة الغشاء CD4tdTomato في عصبونات التفرع الشجيري من الفئة الرابعة. تسلسل تصوير بفاصل زمني يوضح فلورة CD4tdTomato في التفرع الشجيري للفئة الرابعة في يرقة Drosophila المقابلة. توفر علامة الغشاء مرجعاً للمورفولوجيا الشجيرية خلال فترة التصوير. تم الحصول على الصور باستخدام ظروف التصوير الحي الموصوفة في البروتوكول. شريط المقياس، 20 µm. يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
يوضح هذا البروتوكول استخدام سلالات ذباب Jupiter المعدلة وراثياً للتصوير الحي لديناميكيات الأنابيب الدقيقة في العصبونات الحسية لـ Drosophila باستخدام المجهر البؤري. تتيح هذه الطريقة تصور الفلورة المرتبطة بالأنابيب الدقيقة في اليرقات السليمة مع الحفاظ على مورفولوجيا التغصنات، كما تم تقييمه باستخدام علامة غشائية11,29. كما استُخدم نهج مماثل لتصوير ديناميكيات الأكتين باستخدام GFP-actin و LifeAct-GFP في عصبونات الفئة IV22,30,31,32. ومن حيث المبدأ، يمكن تطبيق النهج العام نفسه أيضاً لتصوير بروتينات أخرى مرتبطة بالأنابيب الدقيقة في خلايا الفئة IV وفي فئات أخرى من عصبونات التشجر الشجيري (الفئات I و II و III). وبوجه خاص، فإن الجمع بين وسم الأنابيب الدقيقة الفلوري ووسم EB قد يقلل من الغموض في تفسير نمو الأنابيب الدقيقة. على سبيل المثال، قد يشير غياب مذنّب EB إما إلى غياب الأنابيب الدقيقة أو وجود أنابيب دقيقة لا تنمو بنشاط؛ ويمكن أن يساعد التصوير المباشر للأنابيب الدقيقة في التمييز بين هذه الاحتمالات. وبالتالي، فإن الوسم المشترك لـ mNG-Jupiter مع EB1 الفلوري قد يسمح بتفسير ديناميكيات نمو الأنابيب الدقيقة ضمن السياق المحلي لتنظيم الأنابيب الدقيقة ووفرتها واتجاهها المستنتج.
تعد عدة خطوات حاسمة للحصول على بيانات تصوير حي مناسبة. يستخدم البروتوكول المخدر المتطاير isoflurane لنظام تثبيت محدد وقصير المدى. يجب التحكم في جرعة isoflurane بعناية أثناء التثبيت لأن التخدير غير الكافي يسمح بحركة اليرقات، بينما قد يؤدي التخدير المفرط إلى تحلل عصبي. كما ينبغي تجنب فقاعات الهواء أثناء التثبيت لأنها قد تتداخل مع جودة الصورة وتساهم في إزاحة العينة. بالإضافة إلى ذلك، يجب تجنب الضغط المفرط من غطاء الشريحة لأنه قد يتسبب في تكوين فقاعات شجيرية (dendritic blebbing) وتلف عصبي لاحق. هذه الخطوات مهمة للحفاظ على استقرار العينة ومورفولوجيا الشجيرات طوال عملية التصوير.
يتمثل أحد القيود الهامة لهذا البروتوكول في أن طريقة التثبيت والتصوير، والتي تتضمن الجمع بين التعرض للمخدر والتقييد الفيزيائي بواسطة غطاء الشريحة، قد تؤثر على ديناميكيات الأنابيب الدقيقة. ولتحديد ما إذا كانت الأنابيب الدقيقة قد اضطربت تحت هذه الظروف، يمكن استخدام طرق تثبيت بديلة بشكل منفصل أو بالاشتراك مع هذا البروتوكول. وتشمل هذه النهج تصوير الأجنة واستخدام طفرات حساسة للحرارة، مثل Shibirets 33، متبوعة بمقارنة المعاملات الحركية مثل معدلات النمو وتكرار حدوث الكوارث (catastrophe frequency).
ومع وجود هذا القيد، يسمح البروتوكول الحالي بتصوير اليرقات لمدة 30 دقيقة تقريباً بعد التثبيت دون حدوث تبرعم شجيري، أو تدهور في المورفولوجيا، أو فقدان في ديناميكيات الأنابيب الدقيقة والأطراف القابلة للكشف. تتيح هذه الطريقة الحصول على بيانات عالية الدقة وفترات زمنية متتابعة من يرقات سليمة، وتصور السلوك الديناميكي للأنابيب الدقيقة في التغصنات الطرفية.
الإفصاحات
ليس لدى المؤلفين أي تضارب في المصالح للإفصاح عنه.
شكر وتقدير
يتوجه المؤلفون بالشكر إلى جميع أعضاء مختبر Howard، وخصوصاً العضوة السابقة في المختبر الدكتورة Maijia Liao، لبدء مشروع وسم الأنابيب الدقيقة، والدكتورة Sonal Shree لتطوير بروتوكول تصور الديناميكيات الشجيرية في Drosophila داخل مختبر Howard. وقد حظي البحث الوارد في هذا المنشور بدعم من المعاهد الوطنية للصحة بموجب رقم المنحة R35 GM161634 (المعهد الوطني للعلوم الطبية العامة) ورقم المنحة R01 NS118884 (المعهد الوطني للاضطرابات العصبية والسكتة الدماغية) الممنوحة لـ J.H. ويتحمل المؤلفون وحدهم مسؤولية المحتوى، وهو لا يمثل بالضرورة الآراء الرسمية للمعاهد الوطنية للصحة. كما حظي هذا العمل بدعم من منحة NSF رقم PHY-2210464 ومنحة PEW Charitable Trusts رقم 38044 الممنوحة لـ J.H.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| حمض الأسيتيك (جليدي، كاشف ACS، ≥99.7%) | Sigma-Aldrich | 695092 | تُستخدم لتحضير وسط آجار العنب؛ 5 مل لكل 0.5 لتر تقريبًا من التحضير |
| آجار (باكتوآجار) | Becton Dickinson | 214010 | تُستخدم لتحضير وسط آغار العنب؛ 15 جم لكل 0.5 لتر تقريبًا من التحضير |
| جهاز التخدير الإلكتروني (Anesthetic wand) | Carolina Biological Supply Co. | 173010 | تُستخدم لإبقاء الإيزوفلوران داخل خزان التبخير أثناء تخدير اليرقات |
| كأس زجاجية، 1 لتر، آمنة للاستخدام في الميكروويف | Corning Inc. | 1000-1 لتر | تُستخدم لتحضير 0.5 لتر تقريباً من وسط آجار العنب |
| كأس زجاجية، 100 مل | Corning Inc. | 1000-100 | تُستخدم لتحضير معجون الخميرة |
| مستورد Bio-Formats | مشروع بيئة المجهر المفتوحة | غير قابل للتطبيق | إضافة FIJI المستخدمة لاستيراد ملفات التصوير الزمني بصيغة .ND2 |
| كاميرا (sCMOS, Zyla 4.2 Plus) | Andor Technology | ZYLA-4.2P-USB3 | 6.5 µm مستشعر؛ يستخدم لالتقاط الصور |
| صندوق كرتوني (5 × 5 × 3 بوصات) | يولين (Uline) | S-4579 | تُستخدم لتغطية إعداد التخدير والحد من حركة الهواء فوق طبق زراعة الخلايا |
| طبق زراعة الخلايا | شركة Corning Incorporated | 430165 | 35 × 10 مم؛ تُستخدم للتعامل مع اليرقات وكخزان لتبخير الإيزوفلوران |
| غطاء الشريحة | Globe Scientific Inc. | 1404-15 | 22 × 22 مم، رقم 1.5؛ توضع فوق اليرقة المثبتة |
| غرفة داروين | غرف داروين | IN030-AA-LT-DA-MP | تُستخدم للحفاظ على تهجين الذباب، ووضع البيض، وتحديد مراحل اليرقات في 25 °C |
| ماء مقطر، درجة كواشف مختبرية | Research Products International (RPI) | غير قابل للتطبيق | تُستخدم لتحضير أغار العنب، وتحضير معجون الخميرة، وغسل اليرقات |
| شريط لاصق قوي | Uline | S-6519 | تُستخدم لتثبيت عصا التخدير داخل طبق زرع الخلايا |
| قفص وضع البيض/قفص جمع الأجنة | جينيزي ساينتيفيك (Genesee Scientific) | 59-100 | حجم صغير؛ يناسب 60 × طبق بتري بقطر 15 مم؛ يُستخدم لجمع البيض بطريقة مضبوطة |
| إيثانول (لامائي، بتركيز 200 درجة) | Decon Labs Inc. | V1001G | تُستخدم لتحضير وسط آجار العنب؛ 10 مل لكل 0.5 لتر تقريباً من التحضير |
| FIJI (Fiji Is Just ImageJ) | المعاهد الوطنية للصحة (NIH) | الإصدار 2.16.0/1.54p | تُستخدم لاستيراد الصور، والتثبيت، وإسقاط الكثافة القصوى، وتحليل منطقة الاهتمام (ROI)، وتوليد المخططات الزمنية المكانية (kymograph)، واستخراج ملفات الكثافة. |
| سلالات الذباب: (1) w; ppk-Gal4; ppk-cd4-tdTom; (2) w; w+، UASt-mNeonGreen-Jupiter-RD/CyO | مركز بلومنجتون لسلالات ذبابة الفاكهة (1)؛ مختبر هوارد (2) | BDSC# 32078، BDSC# 35845 | تُستخدم للتعبير عن CD4tdTomato وmNG-Jupiter في عصبونات التغصن الشجيري من الفئة الرابعة |
| عصير العنب، عنب كونكورد 100% | Welch's | غير قابل للتطبيق | تُستخدم لتحضير وسط أغار العنب؛ 126 مل لكل 0.5 لتر تقريبًا من التحضير |
| زيت الهالوكربون 700 | Sigma-Aldrich | H8898 | تُستخدم لتثبيت اليرقات من أجل التصوير الحي |
| موزع الحناء | زير | ZEYER-1005 | تُستخدم لتشكيل غلاف الفازلين على شريحة المجهر |
| مثبت الصورة | طوّره كانغ لي | غير قابل للتطبيق | مكون FIJI الإضافي المستخدم مع إعدادات التحويل الأفيني لتصحيح انزياح العينة |
| إيزوفلوران | Santa Cruz Biotechnology, Inc. | sc-470926 | تُستخدم لتثبيت اليرقات قبل التركيب والتصوير |
| مناديل مختبرية (Kimwipes) | Kimberly-Clark Professional | 34120 | تُستخدم لإزالة الماء الزائد من اليرقات المغسولة قبل التخدير |
| زجاجة الصيانة | Lab Express Inc. | 7001-PBT | زجاجة بولي بروبيلين ذات قاعدة مربعة، سعة 6 أونصات؛ تحتوي على غذاء الذباب ب (وصفة بلومينغتون) وتُستخدم للحفاظ على مخزونات الذباب والتهجينات |
| الميكروويف | Panasonic | NN-SN686S | تُستخدم لإذابة الآجار أثناء تحضير وسط الآجار العنب |
| مجهر مقلوب | Nikon Instruments Inc. | 736228 | مجهر Ti Eclipse المقلوب المجهز بنظام التركيز المثالي (perfect-focus) للتصوير الحي |
| شريحة مجهرية | Fisherbrand | 12550143 | شريحة Superfrost؛ تُستخدم لتثبيت اليرقات من أجل التصوير |
| مخطط الحركة المتعدد (Multi Kymograph) | طوّره كل من Jens Rietdorf وArne Seitz وJohannes Schindelin | غير قابل للتطبيق | مكون إضافي لبرنامج FIJI يُستخدم لإنشاء مخططات كيموغراف لديناميكيات الأنابيب الدقيقة |
| برنامج Nikon Elements | Nikon Instruments Inc. | الإصدار 5.21.03 | تُستخدم لالتقاط صور مجهرية بنظام الفاصل الزمني (time-lapse) وإنشاء ملفات بصيغة .ND2 |
| العدسة الشيئية، الغمر المائي | Nikon Instruments Inc. | MRD77400 | 40×، 1.25 NA؛ تُستخدم للتصوير الحي |
| فرشاة تلوين | سلالة | 2157r | المقاسات 0 و 3/0؛ تُستخدم لنقل اليرقات وإغلاق غلاف الفازلين |
| طبق بتري | فالكون | 351007 | 60 × ١٥ ملم؛ تُستخدم لأطباق آغار العنب |
| ملعقة مختبر (Spatula) | VWR | 82027-532 | ٢٢.٩ سم (٩ بوصات)؛ يُستخدم لخلط الخميرة والماء أثناء تحضير عجينة الخميرة |
| وحدة المجهر متحد البؤر ذات القرص الدوار | Yokogawa CSU-W1 | SBW001 | 50 µm ثقب صغير؛ يُستخدم للتصوير المجهري البؤري الحي |
| السكروز | Sigma-Aldrich | 57-50-1 | تُستخدم في وسط أغار العنب، وكـمحلول بتركيز 5% لغسل اليرقات |
| فازلين | يونيليفر | غير قابل للتطبيق | تُستخدم لتشكيل الغلاف المحيط بين شريحة المجهر وغطاء الشريحة |
| خميرة (خميرة جافة نشطة من Red Star) | مؤسسة Lesaffre | غير قابل للتطبيق | تُستخدم لتحضير عجينة الخميرة ودعم عملية وضع البيض |
المراجع
- Kapitein LC, Hoogenraad CC. Building the neuronal microtubule cytoskeleton. Neuron. 2015;87(3):492–506.
- Howard J, Hyman AA. Dynamics and mechanics of the microtubule plus end. Nature. 2003;422(6933):753–758.
- Jan YN, Jan LY. Branching out: mechanisms of dendritic arborization. Nature Reviews Neuroscience. 2010;11(5):316–328.
- Fujishima K, Horie R, Mochizuki A, Kengaku M. Principles of branch dynamics governing shape characteristics of cerebellar Purkinje cell dendrites. Development. 2012;139(18):3442–3455.
- Grueber WB, Jan LY, Jan YN. Tiling of the Drosophila. epidermis by multidendritic sensory neurons. Development. 2002;129(12):2867–2878.
- Hwang RY, et al. Nociceptive neurons protect Drosophila. larvae from parasitoid wasps. Current Biology. 2007;17(24):2105–2116.
- Grueber WB, et al. Dendrites of distinct classes of Drosophila. sensory neurons show different capacities for homotypic repulsion. Current Biology. 2003;13(8):618–626.
- Guo Y, et al. Identification of the peptide Vulnusin, a wound signal that mediates mechanical-injury-induced nociception in Drosophila. Neuron. 2025;113(20):3352–3362.e5.
- Han C, et al. Integrins regulate repulsion-mediated dendritic patterning of Drosophila. sensory neurons by restricting dendrites in a 2D space. Neuron. 2012;73(1):64–78.
- Grueber WB, et al. Projections of Drosophila. multidendritic neurons in the central nervous system: links with peripheral dendrite morphology. Development. 2007;134(1):55–64.
- Shree S, et al. Dynamic instability of dendrite tips generates the highly branched morphologies of sensory neurons. Science Advances. 2022;8(26):eabn0080. doi: 10.1126/sciadv.abn0080.
- Ouyang X, et al. Neurons exploit stochastic growth to rapidly and economically build dense dendritic arbors. Nature Communications. 2025;16(1):5903. doi: 10.1038/s41467-025-60800-7.
- Mimori-Kiyosue Y, Shiina N, Tsukita S. The dynamic behavior of the APC-binding protein EB1 on the distal ends of microtubules. Current Biology. 2000;10(14):865–868.
- Stepanova T, et al. Visualization of microtubule growth in cultured neurons via .the use of EB3-GFP (end-binding protein 3-green fluorescent protein). Journal of Neuroscience. 2003;23(7):2655–2664.
- Piehl M, Cassimeris L. Organization and dynamics of growing microtubule plus ends during early mitosis. Molecular Biology of the Cell. 2003;14(3):916–925.
- Ori-McKenney KM, Jan LY, Jan YN. Golgi outposts shape dendrite morphology by functioning as sites of acentrosomal microtubule nucleation in neurons. Neuron. 2012;76(5):921–930.
- Stone MC, Roegiers F, Rolls MM. Microtubules have opposite orientation in axons and dendrites of Drosophila. neurons. Molecular Biology of the Cell. 2008;19(10):4122–4129.
- Zheng Y, et al. Dynein is required for polarized dendritic transport and uniform microtubule orientation in axons. Nature Cell Biology. 2008;10(10):1172–1181.
- Zanic M, Stear JH, Hyman AA, Howard J. EB1 recognizes the nucleotide state of tubulin in the microtubule lattice. PLoS One. 2009;4(10):e7585. doi: 10.1371/journal.pone.0007585.
- Carminati JL, Stearns T. Microtubules orient the mitotic spindle in yeast through dynein-dependent interactions with the cell cortex. Journal of Cell Biology. 1997;138(3):629–641.
- Straight AF, Marshall WF, Sedat JW, Murray AW. Mitosis in living budding yeast: anaphase A but no metaphase plate. Science. 1997;277(5325):574–578.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Distinct relations of microtubules and actin filaments with dendritic architecture. iScience. 2020;23(12):101865. doi: 10.1016/j.isci.2020.101865.
- Lee HH, Jan LY, Jan YN. Drosophila. IKK-related kinase Ik2 and Katanin p60-like 1 regulate dendrite pruning of sensory neuron during metamorphosis. Proceedings of the National Academy of Sciences of the United States of America. 2009;106(15):6363–6368.
- Karpova N, et al. Jupiter, a new Drosophila. protein associated with microtubules. Cell Motility and the Cytoskeleton. 2006;63(5):301–312.
- Poe AR, et al. Dendritic space-filling requires a neuronal type-specific extracellular permissive signal in Drosophila. Proceedings of the National Academy of Sciences of the United States of America. 2017;114(38):E8062–E8071.
- Nanda S, Bhattacharjee S, Cox DN, Ascoli GA. Local microtubule and F-actin distributions fully constrain the spatial geometry of Drosophila. sensory dendritic arbors. International Journal of Molecular Sciences. 2023;24(7):6741. doi: 10.3390/ijms24076741.
- Hales KG, Korey CA, Larracuente AM, Roberts DM. Genetics on the fly: a primer on the Drosophila. model system. Genetics. 2015;201(3):815–842.
- Roote J, Prokop A. How to design a genetic mating scheme: a basic training package for Drosophila. genetics. G3: Genes|Genomes|Genetics. 2013;3(2):353–358.
- Shree S, Howard J. Protocol for imaging the same class IV neurons at different stages of development. Bio-protocol. 2024;14(16):e5052. doi: 10.21769/BioProtoc.5052.
- Stürner T, et al. The branching code: a model of actin-driven dendrite arborization. Cell Reports. 2022;39(4):110746. doi: 10.1016/j.celrep.2022.110746.
- Nithianandam V, Chien CT. Actin blobs prefigure dendrite branching sites. Journal of Cell Biology. 2018;217(10):3731–3746.
- Kilo L, Stürner T, Tavosanis G, Ziegler AB. Drosophila. dendritic arborisation neurons: fantastic actin dynamics and where to find them. Cells. 2021;10(10):2777. doi: 10.3390/cells10102777.
- Liao M, Liang X, Howard J. The narrowing of dendrite branches across nodes follows a well-defined scaling law. Proceedings of the National Academy of Sciences. 2021;118(27):e2022395118. doi: 10.1073/pnas.2022395118.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً