يصف هذا البروتوكول تحليل مدى الحياة القائم على الموائع الدقيقة عن طريق المجهر بنظام التصوير الزمني لـ Saccharomyces cerevisiae الأمشاج التي تم الحصول عليها من خلايا سلف شابة أو هرمة.
مقالة منهجية
مقايسة قائمة على الموائع الدقيقة لاكتشاف عوامل تجديد تكوين الأمشاج في Saccharomyces cerevisiae
في هذه المقالة
ملخص
الملخص
Saccharomyces cerevisiae تشيخ تدريجياً من خلال انقسامات خلوية غير متماثلة، حيث تحتفظ الخلية الأم بالتلف المرتبط بالشيخوخة بينما تنتج خلايا بنوية شابة. وتعمل عملية تكوين الأمشاج (Gametogenesis) على إعادة ضبط العمر التكراري للخلايا الهرمة تماماً، مما يؤدي إلى عكس ساعة الشيخوخة للجيل التالي. وبالرغم من وصف تجديد الشباب عن طريق تكوين الأمشاج في الخميرة سابقاً، إلا أنه كانت هناك حاجة إلى تقنيات لتقدير إعادة ضبط العمر التكراري بإنتاجية عالية. وقد اقتصرت الطرق السابقة لتقدير تجديد الشباب بعد تكوين الأمشاج على نهج منخفض الإنتاجية وكثيف العمالة يعتمد على التلاعب الدقيق اليدوي المتكرر بالخلايا الفردية. نصف هنا بالتفصيل مقايسة مجهرية تعتمد على الموائع الدقيقة (microfluidics) ذات إنتاجية عالية، والتي تتيح التوصيف المنهجي للعوامل المطلوبة لتجديد الشباب عن طريق تكوين الأمشاج في S. cerevisiae. تعتمد هذه الطريقة على تعديلين جينيين خاملين يسمحان بتقييم العمر التكراري للأمشاج استناداً إلى الموائع الدقيقة. فبعد فرز الخلايا حسب العمر وفصل الرباعيات، يتم تحميل الأمشاج العقيمتة شرطياً في أجهزة تصوير تعتمد على الموائع الدقيقة وتحديدها باستخدام علامة خاصة بالأمشاج. يتيح التصوير الزمني طويل الأمد تتبعاً ومقارنة قوية للأعمار التكرارية للأمشاج المشتقة من خلايا سلف شابة وهرمة. نقدم هنا بروتوكولاً مفصلاً خطوة بخطوة يتيح التقدير الكمي المنهجي لعمر الأمشاج والتحديد عالي الإنتاجية للعوامل الجزيئية التي تتوسط تجديد الشباب الخلوي عن طريق تكوين الأمشاج في S. cerevisiae.
المقدمة
Saccharomyces cerevisiae تشيخ خلاياها تكرارياً أثناء الانقسام الفتيلي عن طريق الانقسام غير المتماثل، حيث تحتفظ الخلية الأم بالتلف المرتبط بالتقدم في السن بينما تنتج خلايا بنوية شابة1,2,3,4. وبناءً على ذلك، فإن العمر التكراري للخميرة يكون محدوداً، ويُعرف بأنه عدد الخلايا البنوية التي تنتجها خلية أم معينة قبل انقسامها النهائي، الذي يليه الهرم وفي النهاية الموت. ومن المثير للدهشة أنه إذا أكملت خلية S. cerevisiae مسنة عملية تكوين الأمشاج، فإن العمر التكراري لجميع الأمشاج الناتجة يتم إعادة ضبطه بالكامل، مما يجعلها غير قابلة للتمييز عن الأمشاج المشتقة من خلايا سلفية شابة5,6,7,8,9 (الشكل 1A). ومنذ الاكتشاف الأولي لتجديد الشباب المرتبط بتكوين الأمشاج في الخميرة، تم تحديد العديد من العوامل المهمة التي تزيل التلف المرتبط بالتقدم في السن أثناء تكوين الأمشاج، ولكن غياب التقنيات عالية الإنتاجية جعل من الصعب استقصاء تأثير هذه المسارات على العمر التكراري للأمشاج6. تاريخياً، اعتمد قياس العمر التكراري للأمشاج على تسجيل انقسامات الخلايا يدوياً باستخدام مجهر التشريح الدقيق الفلوري، حيث يتم تسجيل العمر التكراري للأمشاج على مدار عدة أيام من خلال العد المستمر والإزالة اليدوية للخلايا البنوية المتولدة7. ورغم إمكانية تحليل العمر التكراري للأمشاج باستخدام هذه التقنية، فإن طبيعتها الشاقة والمستهلكة للوقت أدت إلى تطبيقها بشكل هامشي في هذا المجال على مدى العقد الماضي10,11. إن حقيقة عدم إثبات مساهمة أي مسارات جزيئية محددة بشكل مباشر في تجديد الشباب المرتبط بتكوين الأمشاج منذ اكتشافه الأولي7 تؤكد محدودية التقنية الحالية والحاجة إلى مقايسة آلية وعالية الإنتاجية.
في السنوات الأخيرة، حلت منهجيات جديدة قائمة على الموائع الدقيقة محل تقدير العمر التكاثري عن طريق المناولة الدقيقة، مما ألغى الحاجة إلى الفصل اليدوي للخلايا الوليدة12. وقد تم تصميم مصايد مختلفة لالتقاط الخلايا الأم والاحتفاظ بها في غرف التصوير، مع تدفق مستمر لوسط غذائي جديد طوال فترة عمرها التكاثري الكامل، مما يؤدي إلى جرف الخلايا الوليدة حديثة التكوين. كما يتيح التوازي في عدة غرف تصوير الحصول على بيانات العمر التكاثري لمئات الخلايا من خلفيات جينية مختلفة على مدار عدة أيام في تجربة واحدة13,14,15,16,17,18,19. وبينما تُفضل هذه المنهجيات القائمة على الموائع الدقيقة حالياً لخلايا الخميرة أحادية الصيغة الصبغية التي تنمو خضرياً، إلا أنه لم يتم الإبلاغ عن تطبيق هذه التقنية لقياس العمر التكاثري لأمشاج الخميرة حتى الآن.
ثمة ثلاث عقبات تقنية وبيولوجية رئيسية تعيق تقييم العمر التكراري لأمشاج S. cerevisiae باستخدام أجهزة الموائع الدقيقة. أولاً، أثناء تكوين الأمشاج، تمر خلية الخميرة ثنائية المجموعة الكروموسومية بانقسامين اختزاليين وتُكون رباعية متراصة تحتوي على أربعة أمشاج أحادية المجموعة الكروموسومية مع توزيع بنسبة 2:2 لنوعي التزاوج، MATa و MATα (الشكل 1A). لذا، عند تحميل أمشاج MATa و MATα في أجهزة الموائع الدقيقة، ستؤدي الفيرومونات التزاوجية المفرزة إلى تحفيز استجابة التزاوج في الخلايا المجاورة، مما يؤدي إلى توقف النمو، وظهور مورفولوجيا خلوية غير طبيعية، وانسداد أجهزة الموائع الدقيقة. ثانياً، لا تنفصل الأمشاج الأربعة داخل الكيس الرباعي بشكل طبيعي أثناء الإنبات. وبناءً عليه، بدون الفصل اليدوي، لا يمكن احتجاز سوى الرباعيات الكاملة في غرف الموائع الدقيقة. إن انخفاض قدرة الاحتجاز للرباعيات غير المنفصلة واستعصاء عمليات الانقسام الفردية للأمشاج الأربعة التي لا تزال متصلة يجعل من المستحيل تقييم العمر التكراري لكل مشيج على حدة. ثالثاً، إذا تم فصل الرباعيات إلى أمشاج فردية قبل تحميلها في أجهزة الموائع الدقيقة، فإنها تكون أصغر حجماً بشكل ملحوظ من الخلايا التي تنمو خضرياً ولا يتم التقاطها بواسطة المصائد القياسية (الشكل 2A–C).
للتغلب على هذه القيود، قام Spiri et al. 20269 بالجمع بين تعديلات جينية خاملة، وفصل الرباعيات ونمو الأمشاج، وعلامة مميزة خاصة بالأمشاج لتمكين القياس الكمي عالي الإنتاجية لعمر التكاثر للأمشاج وتوصيف العوامل المطلوبة لتجديد الشباب التكويني للأمشاج في S. cerevisiae (الشكل 1B–F) باستخدام الموائع الدقيقة. أولاً، لمنع التزاوج بعد الإنبات دون التدخل في التهجينات الجينية القياسية، تم هندسة أليل عقيم شرطياً (الشكل 3A). ثانياً، لفصل الرباعيات إلى أمشاج مفردة، تم دمج المعالجة بـ Zymolyase، التي تضعف جدار البوغ الخارجي، مع المناولة الميكانيكية. ثالثاً، لتمكين التحديد الفعال للأمشاج، حتى بعد الفصل والنمو القصير المطلوب لاستخدام مصائد الموائع الدقيقة القياسية، تم إدخال مراسل فلوري خاص بالأمشاج يتسم بطول العمر والبقاء. وباستخدام هذا النهج، يمكن عزل الأمشاج المفردة المشتقة من خلايا سلفية شابة ومسنة تم فرزها مسبقاً وتحميلها في أجهزة الموائع الدقيقة لإجراء تصوير زمني مستمر على مدار 72 h، مما يسمح بالتحليل الكمي والمقارنة لعمر التكاثر للأمشاج من الخلايا السلفية الشابة والمسنة9. إن البروتوكول التفصيلي الموصوف هنا يعزز بشكل كبير من جدوى وإنتاجية تحليل عمر الأمشاج في كل من الخلايا السلفية المسنة والشابة، مما يسمح بالتحديد المباشر للمسارات الجزيئية التي تتوسط تجديد الشباب الخلوي أثناء تكوين الأمشاج.
البروتوكول
توجد قائمة مفصلة بالكواشف والمعدات المستخدمة في هذا البروتوكول في جدول المواد.
1. الشيخوخة التكرارية للخلايا المؤسسة
ملاحظة: تُجرى جميع التجارب التي تستخدم البروتوكول أدناه في خلايا S. cerevisiae ثنائية المجموعة الصبغية من خلفية سلالة SK1 التي تحتوي على الخلفية الجينية الدنيا التالية: pPMA2-PMA2-eGFP, ste5::NATR-pTet07.1-STE5, pRNR2-TetR-TUP1, pTetO7.1-TetR, flo8Δ, amn1D368V. بالنسبة لجميع المزارع التي يتم تحضينها في دوارق زجاجية، يجب ألا يتجاوز حجم المزرعة 1/5 من حجم الدورق لضمان التهوية المناسبة.
- قم بإذابة الخلايا ثنائية الصيغة الصبغية على أطباق جليسيرول بمستخلص الخميرة والببتون (YP)، ثم قم بالتحضين عند 30 °C طوال الليل. انقل الخلايا ثنائية المجموعة الكروموسومية إلى أطباق مستنبت ديكستروز-بيبتون الخميرة (YPD)، وحضّنها عند 30 °C (>٨ ساعات).
- يتم تلقيح السلالات ثنائية المجموعة الكروموسومية (diploids) المذابة حديثاً في 5 مل من وسط YPD السائل (2% ديكستروز). تُرجّ المزارع (300 دورة في الدقيقة) في درجة حرارة الغرفة طوال الليل (>١٢ ساعة).
- أعد تخفيف المزرعة البادئة حتى تصل الكثافة الضوئية عند 600 نانومتر (OD600) إلى600) = 0.2 في 30 مل من وسط YPD (2% ديكستروز). يتم رج المزارع (300 دورة في الدقيقة) عند 30 °C لمدة 3-4 ساعات حتى تصل المزارع إلى الكثافة الضوئية (OD)600 = 0.6–1.
- تأكد من البدء بكمية كافية من المزرعة للوصول إلى كثافة ضوئية (OD) تبلغ 16.600 وحدات الخلايا المراد وسمها لكل نمط جيني. انقل 2 × 8 من الكثافة الضوئية (OD).600 وحدات الخلايا لكل نمط جيني في أنبوب مخروطي سعة 50 مل.
- يُنصح بـ: تقسيم 16 OD600 وحدات إلى عينتين (8 OD600 (وحدة لكل منهما) لإنشاء مزرعتين مستقلتين من الخلايا المؤسسة لكل نمط جيني. بعد فرز الخلايا حسب العمر (الخطوة 2.16)، ادمج الخلايا المسنة من مزرعتي الخلايا المؤسستين لزيادة الحصيلة الإجمالية للخلايا المسنة.
- قم بطرد مركزي للأنبوب المخروطي سعة 50 مل لمدة دقيقتين بسرعة 1,900 x g جـ ثم يتم سكب السائل الطافي. وتُعلق الراسبة في 20 مل من المحلول الملحي الموقوت بالفوسفات (PBS) (الرقم الهيدروجيني 8).
- كرر الخطوة 1.6 مرتين إضافيتين لإجراء ما مجموعه ثلاث غسلات في محلول PBS (برقم هيدروجيني 8). قم بتحضير محلول بيوتين بتركيز 8 ملغم/مل (500 μL المطلوب لكل 8 وحدات من الكثافة الضوئية (OD)600 وحدات من الخلايا).
- زِن البيوتين (4 ملغ/عينة) وعلق المسحوق تماماً في محلول PBS (بدرجة حموضة 8) للوصول إلى تركيز نهائي قدره 8 ملغ/مل (500 μL (الكمية المطلوبة لكل عينة). بعد الغسلة الثالثة، يتم إعادة تعليق الخلايا في 1 مل من المحلول الملحي المنظم بالفوسفات PBS (برقم هيدروجيني 8).
- توزيع 500 μL المعلق الخلوي إلى أنبوبي طرد مركزي منخفضي الالتصاق، مع تقسيم القيمة الأولية 2 × 8 OD600 وحدات. أضف 500 μL محلول البيوتين (8 مجم/مل) إلى كل أنبوب طرد مركزي ليصل الحجم الإجمالي إلى 1 مل (الشكل 1ب).
- أحكم إغلاق الغطاء باستخدام البارافيلم (parafilm) ثم قم بالرج باستخدام جهاز الفورتكس (vortex) لمدة دقيقة واحدة. تُعد الخلايا الهرمة حساسة للإجهاد الميكانيكي؛ لذا تكون هذه المرة الأخيرة التي يتم فيها رج الخلايا بجهاز الفورتكس. ومن الآن فصاعداً، قم بإعادة تعليق كرات الخلايا عن طريق السحب والضخ اللطيف باستخدام الماصة.
- انقل أنابيب الطرد المركزي إلى حامل دوّار واحضنها لمدة 30 دقيقة عند 4 °Cيتم الطرد المركزي لمدة دقيقتين عند 1,900 x g. جثم يتم سحب السائل الطافي باستخدام الماصة. أعد تعليق الراسب في 1 مل من المحلول الملحي المعبأ بالفوسفات (PBS) (الرقم الهيدروجيني 8 + 100 ملي مولار من الغليسين) لإخماد البيوتين الزائد كيميائياً.
- كرر الخطوة 1.11 ثلاث مرات إضافية لإتمام 3 غسلات بمحلول PBS (الرقم الهيدروجيني 8 + 100 مللي مولار جلايسين). أعد تعليق الخلايا في 1 مل من وسط YPD (2% ديكستروز).
- يُوضع في جهاز الطرد المركزي لمدة دقيقتين بسرعة 1,900 x g ج ثم يتم سحب السائل الطافي باستخدام الماصة. قم بتحضير 50 مل من وسط YPD (دكستروز 2%) + أمبيسيلين (100 µg/mLمزارع في دوارق سعة 500 مل لكل عينة مُوسومة بالبيوتين.
- أعد تعليق الخلايا الموصومة بالبيوتين في 1 مل من وسط YPD (دextrose بنسبة 2%) وأضفها إلى دورق سعة 500 مل. قم بقياس الكثافة الضوئية (OD600) من المزرعة الأصلية لتقدير عدد الأجيال في اليوم التالي.
- رجّ المزارع الأصلية (300 دورة في الدقيقة) عند 30 °C طوال الليل (16-18 ساعة) لتحقيق الشيخوخة التكرارية (الشكل 1Bسيؤدي ذلك إلى حدوث 6-7 انقسامات تقريبًا لكل خلية مؤسسة موسومة بالبيوتين.
2. عزل الخلايا المؤسسة المتقدمة في السن
ملاحظة: يُحفظ محلول PBS (pH 7.4) + BSA (5 g/L) عند درجة حرارة 4 °C ويُبقى على الثلج أثناء التجربة.
عند إعادة تخفيف كتل الخلايا، تأكد من إعادة تعليقها وخلطها بالكامل لتجنب انسداد العمود ورفع كفاءة الفرز إلى أقصى حد. ولتعزيز نقاء مجموعة الخلايا الهرمة، يتم إجراء عمليتي فرز متتاليتين عن طريق إعادة تطبيق ناتج الشطف من عمود الفرز الأول على عمود فرز ثانٍ جديد. تؤدي هذه العملية إلى الحصول على مجموعات خلايا هرمة بأدنى حد من التلوث بالخلايا الشابة (نقاء بنسبة 90–98%). وتعتبر الخلايا الهرمة حساسة للإجهاد الميكانيكي؛ لذا يجب إعادة تعليق كتل الخلايا عن طريق السحب والضخ اللطيف باستخدام ماصة سيرولوجية.
- بعد فترة تحضين تتراوح بين 16-18 h، سجل الكثافة الضوئية (OD600) لكل مزرعة مؤسسة. احسب العدد التقديري للأجيال (متوسط العمر = log2(OD600End / OD600Start)).
- قم بطرد مركزي لكل مزرعة لمدة 2 min عند 1,900 x g في أنابيب مخروطية سعة 50 mL ثم تخلص من السائل الطافي. أعد تعليق الراسب في 20 mL من PBS (pH 7.4 + BSA (5 g/L)) عن طريق السحب والضخ باستخدام ماصة سيرولوجية سعة 25 mL.
- كرر الخطوة 2.2 مرة واحدة. اخلط قارورة معلق Anti-Biotin MicroBeads عن طريق القلب. وباستخدام طرف ماصة مقصوص، أضف 100 μL من Anti-Biotin MicroBeads إلى معلق الخلايا.
- اخلط عن طريق القلب. حضن عند 4 °C لمدة 15 min. يتم التحضين على حامل دوار أو قلب الأنبوب على الأقل 3-4 مرات كل 5 min (الشكل 1C).
- قم بتجهيز الحامل المغناطيسي QuadroMACS، والأعمدة، وفلاتر ما قبل الفصل (30 µm). ضع وعاءً أسفل العمود لجمع كافة النفايات المتدفقة.
- قم بتجهيز كل فلتر/عمود بـ 3 mL من PBS (pH 7.4 + BSA (5 g/L)). ضع ملصقات على أنبوبين مخروطيين سعة 15 mL لكل عمود وكل حالة (واحد لـ "strait aged cell eluate" وآخر لـ "young cell flow-through").
- قم بطرد مركزي لمعلقات الخلايا لمدة 2 min عند 1,900 x g وتخلص من السائل الطافي. أعد تعليق الراسب في 20 mL من PBS (pH 7.4 + BSA (5 g/L)) ثم قم بالطرد المركزي مرة أخرى.
ملاحظة: هذه الخطوة مهمة لإزالة Anti-Biotin MicroBeads الحرة الزائدة، والتي قد تؤدي بخلاف ذلك إلى إشباع العمود. - أعد تعليق راسب الخلايا تماماً في 5 mL من PBS (pH 7.4 + BSA (5 g/L)) وضعه في عمود الفرز الأول (الشكل 1C). ضع ملصقات على الأعمدة توضح النمط الجيني المستخدم للمتابعة.
- اجمع التدفق النافذ الأول في الأنابيب المخروطية سعة 15 mL المسمى "young cell flow-through". استبدل الأنابيب المخروطية سعة 15 mL بوعاء نفايات التدفق النافذ بمجرد مرور معلق الخلايا عبر العمود.
- اجمع معلقي التدفق النافذ للخلايا الشابة من نفس النمط الجيني في أنبوب مخروطي واحد سعة 15 mL. خفف 250 μL من التدفق النافذ المجمع للخلايا الشابة في 9.75 mL من PBS (pH 7.4 + BSA (5 g/L)) في أنبوب مخروطي جديد سعة 15 mL. اعزلها بملصق "diluted young cells" لاستخدامها في الخطوات اللاحقة.
- اغسل كل عمود 4 مرات بـ 3 mL من PBS (pH 7.4 + BSA (5 g/L)). في الغسلة الأولى، ضع مقدار 3 mL من PBS (pH 7.4 + BSA (5 g/L)) مرة أخرى في الأنبوب المخروطي سعة 50 mL الذي كان يحتوي على معلق الخلايا. انقل المحلول إلى العمود المقابل لتطبيق أي خلايا متبقية على العمود. اغسل العمود 3 مرات باستخدام 3 mL طازجة من PBS (pH 7.4) + BSA (5 g/L).
- جهز أعمدة جديدة وفلاتر ما قبل فصل (30 µm) لعملية الفرز الثانية. قم بتجهيز كل فلتر/عمود بـ 3 mL من PBS (pH 7.4 + BSA (5 g/L)).
- أخرج العمود الأول من المغناطيس وثبته فوق العمود الثاني للفرز الثاني. أضف 5 mL من PBS (pH 7.4 + BSA (5 g/L)) إلى العمود الأول واضغط بثبات (بلطف ولكن بقوة) باستخدام المكبس المرفق لاستخلاص الخلايا الهرمة.
- ضع الخلايا الهرمة المستخلصة في العمود الثاني. ضع ملصقات على الأعمدة توضح النمط الجيني المستخدم للمتابعة.
- اغسل كل عمود 3 مرات بـ 3 mL من PBS (pH 7.4) + BSA (5 g/L). أخرج العمود من المغناطيس وضعه في أنبوب مخروطي سعة 15 mL مسمى "aged cell eluate". أضف 5 mL من PBS (pH 7.4) + BSA (5 g/L) إلى الأعمدة واضغط بثبات (بلطف ولكن بقوة) باستخدام المكبس المرفق لاستخلاص الخلايا الهرمة.
- اجمع مستخلصين من مزرعتين مؤسستين مستقلتين من نفس النمط الجيني لزيادة الحصيلة الكلية من الخلايا الهرمة (راجع الخطوة 1.5).
3. الوسم الفلوري لندبات البراعم والبيوتين
ملاحظة: عند وسم الخلايا بالأصباغ الفلورية، يجب حمايتها من الضوء أثناء فترة التحضين. يتم الحصول على وسائط تحفيز تكوين الأمشاج المكيّفة عن طريق التعقيم بالترشيح لمزرعة تحفيز تكوين الأمشاج في وسائط تحفيز تكوين الأمشاج القياسية بعد 5 h من بدء تحفيز تكوين الأمشاج. تُحفظ وسائط تحفيز تكوين الأمشاج المكيّفة مغلقة بإحكام باستخدام البارافلم عند 4 °C.
- يتم طرد الخلايا المدمجة من المعلق الخلوي المتقدم في السن والمعلق الخلوي الشاب المخفف مركزياً لمدة 2 min بسرعة 1,900 x g، ثم يتم سكب السائل الطافي. أعد تعليق الخلايا في 12 mL من محلول PBS (pH 7).
- كرر الخطوة 3.1 مرتين، وفي المرة الثانية يتم إعادة تعليق الخلايا في 4 mL من محلول PBS (pH 7). أضف 4 μL من جلوتينين جنين القمح المسمى فلوروسنتياً (1 µg/mL) و 4 μL من الستريبتاديفين المسمى فلوروسنتياً (1 µg/mL) إلى كل أنبوب (الشكل 1C).
- تحضن العينات لمدة 15 min في الظلام في درجة حرارة الغرفة. يتم قلب الأنابيب 3–4 مرات كل 5 min. تُطرد الخلايا مركزياً لمدة 2 min بسرعة 1,900 x g، ثم يُسكب السائل الطافي.
- أعد تعليق الخلايا في 12 mL من وسط تحفيز تكوين الأمشاج. كرر عملية الغسل عن طريق الطرد المركزي وإعادة التعليق ثلاث مرات؛ وبعد الغسلة الأخيرة، أعد تعليق الخلايا في 2 mL من وسط تحفيز تكوين الأمشاج المكيّف الذي يحتوي على الأمبيسيلين (100 µg/mL).
4. تحفيز تكوين الأمشاج وتحليل فرز العمر
تنبيه: مادة الفورمالديهايد سامة ومخرشة؛ لذا يجب التعامل معها داخل خزانة استخلاص الغازات الكيميائية مع ارتداء معدات الوقاية الشخصية (PPE) المناسبة.
- قس الكثافة الضوئية (OD600) لمعلق الخلايا المعاد تعليقه (من الخطوة 3.4). خفف المزارع لتصل إلى OD600 بقيمة 0.8 باستخدام وسط مُحفز لتكوين الأمشاج مُكيّف يحتوي على الأمبيسيلين (100 µg/mL)، ثم انقلها إلى دورق زجاجي.
ملاحظة: يعتمد الحجم على الإنتاج الكلي للخلايا الهرمة؛ حيث يعد حجم المزرعة النهائي البالغ 10 mL كافياً للتطبيقات اللاحقة. - قم بتوزيع 135 μl من المزرعة المخففة ما قبل تكوين الأمشاج في أنابيب طرد مركزي سعة 1.5 mL تحتوي على 15 μl من الفورمالديهايد (37%). قم بتدويرها وتحضينها في درجة حرارة الغرفة لمدة 15 دقيقة. تُحفظ عند 4 °C.
- رج المزارع (300 rpm) عند 30 °C لمدة 24 ساعة لإتمام عملية تكوين الأمشاج (الشكل 1C).
نقطة توقف: يمكن إجراء تصوير الخلايا المثبتة بالفورمالديهايد في أي وقت مناسب. ومع ذلك، يُوصى بالتحقق من كفاءة فرز الخلايا الهرمة قبل المتابعة في بقية البروتوكول. يمكن تخزين الخلايا لمدة تصل إلى 48 ساعة في وسط التثبيت بالفورمالديهايد عند 4 °C. للتخزين طويل الأمد، استبدل المحلول المحتوي على الفورمالديهايد بـ السوربيتول (1.2 M) وخزنها عند -20 °C. - قبل التصوير، قم بطرد الخلايا المثبتة بالفورمالديهايد مركزياً لمدة 2 دقيقة عند 1,900 x g. اسحب السائل الطافي باستخدام الماصة وانقله إلى حاوية مخصصة لنفايات الفورمالديهايد.
- أعد تعليق الخلايا في 20 μL من السوربيتول (1.2 M). أضف 3.3 μL من معلق الخلايا إلى شريحة قياسية وضع غطاءً زجاجياً بمقاس 22 x 22 مم.
- قم بالتقاط مجموعة صور مكدسة محورياً (z-stack) تشمل الحجم الكامل للخلايا في قنوات DAPI و mCherry و FITC والتباين التداخلي التفاضلي (DIC) لتقييم عدد ندبات التبرعم، وعلامة البيوتين، و Pma2-GFP (الشكل 1C و الشكل 4A؛ تظهر بالألوان الأرجوانية والصفراء والزرقاء السماوية، على التوالي).
- استمر في التقاط صور لما لا يقل عن 50 خلية لكل حالة.
5. تحليل الصور لتقييم كفاءة وسم البيوتين وعدد ندبات البراعم
نقطة توقف: يمكن إجراء تحليل الصور للتحقق من الفصل العمري في أي وقت مناسب. ومع ذلك، يُوصى بالتحقق من كفاءة الفرز قبل المتابعة في بقية البروتوكول.
ملاحظة: يتم قياس الصور كمياً باستخدام وحدات ماكرو (macros) مخصصة وشبه آلية في برنامج Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m)20,21. تم تدوين ملاحظات محددة حول مدخلات الماكرو في ترويسة كل ماكرو، ويتعين تكييفها وفقاً لبيانات المدخلات الفردية.
- افتح برنامج Fiji/ImageJ. قم بسحب وإفلات الماكرو Manual ROI Selection and TIFF Export (Supplementary File 1) داخل Fiji/ImageJ لفتحه.
- انقر على Run في نافذة الماكرو. اختر مجلدي الإدخال والإخراج كما هو مطلوب، ثم انقر على OK.
- ارسم مستطيلاً حول الخلايا المستهدفة وأضف كل مستطيل إلى مدير مناطق الاهتمام (ROI manager) يدوياً أو باستخدام الاختصار t. احرص على تضمين الخلية كاملة داخل المستطيل مع ترك هامش يقارب قطر خلية واحدة من كل جانب.
- بمجرد إضافة جميع مناطق الاهتمام (ROI) إلى مدير مناطق الاهتمام من الصورة الأولى، انقر على OK في نافذة التنبيه: Action Required (all ROI selected and saved to ROI manager (t)?) (Supplementary Figure 1). سيتم قص جميع مناطق الاهتمام المختارة وحفظها تلقائياً، ثم سيتم فتح الصورة التالية في مجلد الإدخال تلقائياً.
- كرر الخطوات 5.3–5.4 لجميع الصور في مجلد الإدخال. يتوقف الماكرو بمجرد الانتهاء من جميع الصور في مجلد الإدخال. قم بسحب وإفلات الماكرو Single-Cell 3D and Z Projection (Supplementary File 2) داخل Fiji/ImageJ لفتحه.
- قم بتعديل تباعد المقاطع (slice spacing) في الأمر 3D Project… إذا لزم الأمر. انقر على Run في نافذة الماكرو. اختر مجلدي الإدخال والإخراج كما هو مطلوب، ثم انقر على OK.
ملاحظة: سيعمل الماكرو تلقائياً دون الحاجة إلى أي تدخل من المستخدم، ويتوقف بمجرد معالجة جميع الصور في المجلد. - انقل جميع الصور التي تبدأ باسم Y_projection… إلى مجلد إدخال جديد لعملية العد. قم بسحب وإفلات الماكرو Manual Budscar and Biotin Annotation (Supplementary File 3) داخل Fiji/ImageJ لفتحه.
- انقر على Run في نافذة الماكرو. اختر مجلدي الإدخال والإخراج كما هو مطلوب، ثم انقر على OK. قم بعدّ ندبات التبرعم (bud scars) عن طريق تدوير الخلية في البعد الثالث (3D).
ملاحظة: يتم عد كل بنية حلقية موجبة لصبغتي DAPI وmCherry كندبة تبرعم واحدة، ما لم تكن متداخلة وتمثل نفس حدث ندبة التبرعم. لا تُحسب العلامة الدائرية الممتلئة والموجبة للبيوتين (mCherry) الموجودة على كل خلية منذ نشأتها ضمن العدد الإجمالي لندبات التبرعم (Figure 4A). - انقر على OK في نافذة التنبيه: Action Required (Number of bud scars?). اختر عدد ندبات التبرعم التي تم عدّها في نافذة التنبيه، ثم انقر على OK (Supplementary Figure 2).
- حدد ما إذا كانت الخلية موسومة بالبيوتين من خلال فحص إشارة mCherry. إذا كانت الخلية موجودة أثناء عملية الوسم بالبيوتين، ستكون الخلية كاملة موجبة لـ mCherry (Figure 4A).
- انقر على OK في نافذة التنبيه: Action Required (Biotin label: No = 0/ Yes = 1?). اختر 0 إذا كانت الخلية غير موسومة بالبيوتين، و1 إذا كانت الخلية موسومة بالبيوتين. في نافذة التنبيه الأخرى، انقر على OK (Supplementary Figure 3).
- سيتم تسجيل النتائج تلقائياً في نافذة السجل (Log window) وحفظها كملف .txt في مجلد الإخراج. لا تغلق نافذة السجل أثناء عملية العد.
- سيتم فتح الصورة التالية تلقائياً. كرر الخطوات 5.9–5.13 لجميع الصور في مجلد الإدخال. يتوقف الماكرو بمجرد معالجة جميع الصور في مجلد الإدخال.
6. تقييم كفاءة تكوين الأمشاج وتحليل عمر الرباعيات
ملاحظة: من المهم إعادة التحقق من فصل أعمار الرباعيات لاستبعاد استنزاف الخلايا الهرمة الناتج تحديداً عن عملية تكوين الأمشاج. استخدم مسار التحليل ذاته المستخدم للخلايا قبل تكوين الأمشاج الموصوف في الخطوة 5 (تحليل الصور لتقييم كفاءة وسم البيوتين وعدد ندوب التبرعم)، مع اختلاف أن الرباعيات فقط هي التي يتم قصها واستخدامها للتحليل في ظروف ما بعد تكوين الأمشاج، حيث إن الأمشاج الموجودة داخل الرباعيات فقط هي التي ستنجو من المعالجة بـ Zymolyase وبالتالي تساهم في مجموعة الأمشاج. يتم قياس الصور كمياً باستخدام وحدات ماكرو Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m)20,21 شبه آلية مخصصة. تتوفر ملاحظات محددة حول مدخلات الماكرو في ترويسة كل ماكرو ويجب تكييفها وفقاً لبيانات الإدخال الفردية.
نقطة توقف: يمكن حساب كفاءة التبوغ بعد إعداد عملية فصل الأبواغ عن طريق تخصيص جزء (100 μl) من المزرعة الأولية في أنبوب طرد مركزي لغرض العد.
- احسب كفاءة التبوغ من خلال تحديد عدد المونادات (monads) والدايدات (dyads) والتترادات (tetrads) لـ 300 خلية من كل مزرعة باستخدام المجهر الضوئي.
- بعد 24 h في أوساط تحفيز تكوين الأمشاج، انقل 135 μL من مزرعة ما بعد تكوين الأمشاج المخففة (من الخطوة 4.3) إلى أنابيب تحتوي على 15 μL من الفورمالديهايد (37%).
- قم بالتدوير والتحضين في درجة حرارة الغرفة لمدة 15 min. تُخزن عند 4 °C.
نقطة توقف: إذا تم تقييم فرز العمر للخلايا ما قبل تكوين الأمشاج، يمكن إجراء تصوير للتترادات المثبتة بالفورمالديهايد في أي وقت مناسب. يمكن تخزين الخلايا لمدة تصل إلى 48 h في أوساط التثبيت بالفورمالديهايد عند 4 °C. للتخزين طويل الأمد، استبدل المحلول المحتوي على الفورمالديهايد بالسوربيتول (1.2 M) وخزنها عند -20 °C. - قبل التصوير، قم بطرد الخلايا المثبتة بالفورمالديهايد مركزياً لمدة 2 min عند 1,900 x g. اسحب السائل الطافي باستخدام الماصة وانقله إلى حاوية مخصصة لنفايات الفورمالديهايد.
- أعد التعليق في 20 μL من السوربيتول (1.2 M). أضف 3.3 μL من معلق الخلايا إلى شريحة قياسية وضع غطاء شريحة بمقاس 22 x 22 mm.
- التقط مصفوفة z-stack تشمل الحجم الكامل للخلايا في قنوات DAPI و mCherry و FITC و DIC لتقييم عدد ندبات التبرعم، وعلامة البيوتين، و PMA2-GFP (الشكل 1D و الشكل 4A؛ تظهر باللون الأرجواني والأصفر والسماوي، على التوالي).
- استمر في التصوير لما لا يقل عن 50 تتراد لكل حالة.
نقطة توقف: إذا تم تقييم فرز العمر للخلايا ما قبل تكوين الأمشاج، يمكن إجراء تحليل لكفاءة وسم البيوتين وعدد ندبات التبرعم على التترادات في أي وقت يكون أكثر ملاءمة. - حلل كفاءة وسم البيوتين وعدد ندبات التبرعم للتترادات ما بعد تكوين الأمشاج كما هو موضح في الخطوة 5.
7. فصل الرباعيات إلى أمشاج مفردة
ملاحظة: بعد المعالجة بإنزيم Zymolyase، تصبح الخلايا لزجة للغاية؛ لذا يجب توخي الحذر عند إعادة تعليق كتل الخلايا لتجنب سحبها أو فقدانها. يتم تحضير وسط YPD (بتركيز 2% dextrose) + ampicillin (بتركيز 100 µg/mL) بشكل طازج ومعقم بالترشيح في يوم التجربة للتخلص من أي شوائب أو رواسب غير مرغوب فيها.
تنبيه: مادة β-mercaptoethanol سامة ومتطايرة؛ لذا يجب التعامل معها داخل خزانة استخلاص الأدخنة مع ارتداء معدات الوقاية الشخصية المناسبة.
- بعد 24 ساعة في أوساط تحفيز تكوين الأمشاج، انقل المزارع (من الخطوة 4.3) إلى أنابيب مخروطية سعة 15 mL. قم بالطرد المركزي لمدة 2 min بسرعة 1,900 x g ثم تخلص من السائل الطافي بالصب.
- أعد التعليق في 900 μl من H2O منزوع الأيونات ومعقم، وانقل المزيج إلى أنابيب ذات التصاق منخفض سعة 1.5 mL. أضف 100 μL من Zymolyase (بتركيز 1 mg/mL).
- داخل خزانة استخلاص الغازات، أضف 2 μL من β-mercaptoethanol. أحكم إغلاق الأنابيب باستخدام البارافيلم، وانقلها إلى حامل دوار، واحضنها لمدة 3 h عند 30 °C (الشكل 1D).
- بعد 3 h من الحضن، انقل المعلق إلى أنبوب مخروطي سعة 15 mL. استخدم الماصة بعناية؛ حيث أن الخلايا تكون لزجة جداً. قم بطرد العينات مركزياً لمدة 2 min بسرعة 1,900 x g. اسحب السائل الطافي بالكامل وبحذر، مع تجنب ملامسة الراسب اللزج، ثم أعد التعليق في 1 mL من H2O منزوع الأيونات ومعقم.
- كرر الخطوة 7.4 مرة واحدة. قم بمعالجة العينات بالموجات فوق الصوتية باستخدام جهاز سونيكيتور يدوي (الشكل 1D). طبق السونيكيتور على العينات لمدة 20 ثانية بمعدل 1 نبضة/ثانية ودورة تشغيل 50%. ضع العينات على الثلج لمدة 1 min بين كل دورة سونيكيتور.
- اغسل السونيكيتور باستخدام إيثانول 70% بين العينات. كرر إجراء السونيكيتور الموصوف في الخطوة 7.5 خمس مرات إضافية ليصبح المجموع ست دورات سونيكيتور.
- تحقق من انفصال الرباعيات باستخدام مجهر ضوئي (الشكل 3B). أضف 1 mL من YPD (2% dextrose) + ampicillin (بتركيز 100 µg/mL) (معقم بالترشيح في يوم التجربة) إلى كل عينة.
- أعد التخفيف لتصل الكثافة الضوئية OD600 = 0.8 باستخدام YPD (2% dextrose) + ampicillin (بتركيز 100 µg/mL). يعتمد الحجم على الحصيلة الإجمالية للخلايا المنفصلة.
ملاحظة: الحجم الأقصى هو 12 mL في حال استخدام أنابيب مخروطية سعة 15 mL. - قم بترشيح المزارع عبر مرشح ما قبل الفصل في أنبوب مخروطي جديد سعة 15 mL. انقلها إلى حامل دوار، واحضنها عند 30 °C لمدة 3 h قبل تحميلها في الأجهزة الموائعية الدقيقة (الشكل 1D).
8. تحضير جهاز الموائع الدقيقة
ملاحظة: يصف هذا القسم إعداد الأجهزة الموائعية الدقيقة (الشكل 2A–C) وفقاً لتوصيات الشركة المصنعة، باستخدام مجهر فلوري مقلوب مزود بغرفة تحكم بيئية. استخدم الإيثانول بتركيز 70% لتعقيم منطقة العمل والمقصات والأنابيب والقفازات طوال عملية الإعداد لتقليل مخاطر حدوث تلوث. وللحد من خطر تكتل الخلايا وانسداد القنوات أثناء التجربة، يتم إضافة Pluronic F-127 إلى أوساط النمو. قم بإذابة 5 g من مسحوق Pluronic F-127 (بتركيز 10 g/L) في 500 mL من وسط YPD (الذي يحتوي على 2% dextrose) قبل يوم واحد من التجربة، ثم أضف الأمبيسيلين (100 µg/mL)، وقم بالتعقيم عن طريق الترشيح قبل 1–2 h من الاستخدام. تأكد من عدم بقاء أي فقاعات هوائية في محاقن الأوساط أو الأنابيب أثناء إعداد الجهاز الموائعي الدقيق.
- أذب 5 جم من مسحوق Pluronic F-127 (بتركيز 10 جم/لتر) في 500 مل من وسط YPD (بتركيز 2% ديكستروز). يتم التحضير قبل يوم واحد من التجربة ويُترك ليذوب طوال الليل. وفي يوم التجربة، أضف الأمبيسيلين (100 µg/mLإلى وسط YPD (ديكستروز 2%)، وPluronic F-127 (10 جم/لتر).
- قم بتعقيم وسط YPD (ديكستروز 2%) + الأمبيسيلين بالترشيح (100 µg/mL) + Pluronic F-127 (10 جم/لتر). يُترك المزيج لمدة تتراوح بين ساعة وساعتين قبل تحميل مضخات الأوساط لإزالة فقاعات الهواء التي نتجت عن عملية الترشيح.
- افحص الجهاز الموائع الدقيقة للتأكد من عدم وجود أي تلف، مثل تشقق الزجاج الغطائي. سُد منافذ تحميل الخلايا باستخدام دبابيس صلبة من الفولاذ المقاوم للصدأ (الشكل 2A،د،هـ).
ملاحظة: يجب توخي الحذر وعدم إدخال دبابيس الفولاذ المقاوم للصدأ الصلبة بعمق شديد في منافذ تحميل الخلايا، لأن ذلك قد يجعل عملية إزالتها صعبة أثناء تحميل الخلايا. - قص أنبوب مخرج الوسط الغذائي بالطول اللازم لتوصيل منفذ مخرج الوسط بحاوية تجميع النفايات، مع ترك مساحة كافية من الارتخاء للسماح بحركة المنصة أثناء التصوير (الشكل 2أ،G).
- قم بتوصيل دبابيس الفولاذ المقاوم للصدأ المجوفة بأنابيب مخرج الوسائط. ثم أدخل الدبابيس المجوفة والأنابيب في منافذ مخرج الوسائط (الشكل 2D–F). أضف الزيت إلى عدسة microscope الشيئية وغطاء الزجاج الموجود على جهاز الموائع الدقيقة.
- ثبّت جهاز الموائع الدقيقة على المجهر (الشكل 2G). حدد المستوى البؤري لوحدات التصوير وافحص سلامة هياكل المصيدة على شكل حرف U المصنوعة من البولي ثنائي ميثيل سيلوكسان (PDMS) (الشكل 2ج).
- قم بتوصيل الأنبوب مباشرة من منفذ مخرج الوسط إلى حاوية النفايات (الشكل 2G). قم بتثبيت أنابيب مخرج الوسط باللاصق على منصة المجهر (الشكل 2G, شريط لاصق أخضر).
- تأكد من أن أنبوب مخرج الوسط الغذائي يرتفع بشكل كافٍ فوق قاع حاوية النفايات، وذلك لتجنب غمر الأنبوب في الوسط الغذائي العادم الذي سيتراكم أثناء التجربة، مما قد يؤدي إلى تولد ضغط عكسي.
- قم بتقصير أنابيب مخرج الوسط الغذائي إذا لزم الأمر. قص أنبوب مدخل الوسط الغذائي إلى الطول اللازم لتوصيل منفذ مدخل الوسط بالحقن الخاصة بالوسط الغذائي الموضوعة على المضخات الدقيقة. اترك قدراً من الارتخاء للسماح بحركة المنصة أثناء التصوير.
- قم بتوصيل دبابيس الفولاذ المقاوم للصدأ المجوفة بأنبوب مدخل الوسط. افتح عبوة المحقنة سعة 20 مل وقم بتفريغ الهواء منها تماماً.
- خذ 20 مل من وسط YPD (2% ديكستروز) + أمبيسيلين (100 µg/mL) + Pluronic F-127 (بتركيز 10 جم/لتر) في محاقن سعة 20 مل. قم بتوصيل محول محقنة برأس محقنة الوسط الغذائي.
- تأكد من ربط مهيئ المحقنة بإحكام. قم بتوصيل أنبوب مدخل الوسط بمهيئ محقنة الوسط. ثبّت الطرف الآخر من أنبوب مدخل الوسط بشريط لاصق في حاوية تجميع النفايات، بحيث يكون الدبوس المجوف المصنوع من الفولاذ المقاوم للصدأ مواجهًا للحاوية.
- قم بطرد فقاعات الهواء المتبقية من سرنجة الوسط بعناية. أمسك سرنجة الوسط بشكل رأسي، مما يسمح لفقاعات الهواء بالصعود نحو رأس السرنجة. اضغط لطرد فقاعات الهواء والوسط عبر الأنبوب إلى حاوية النفايات.
- انقر بلطف بجانب المحقنة على الطاولة مع إمساكها في وضع عمودي لطرد أي فقاعات هواء متبقية، ثم أعد تطبيق الضغط حتى يتم تفريغ جميع فقاعات الهواء. افحص الأنابيب والمحقنة بعناية للتأكد من خلوهما من أي فقاعات هواء متبقية.
- ثبّت محقنة الوسط على المضخة الدقيقة. في حال استخدام مضخة دقيقة متعددة الفتحات، كرر خطوات تحضير المحقنة الموضحة في الخطوات 8.10-8.14 لكل محقنة إضافية، وثبّت كل محقنة مُحضرة على المضخة الدقيقة حتى يتم ملء جميع الفتحات المطلوبة. حرّك مكبس المضخة الدقيقة للأمام حتى يتعشق مع مكابس المحاقن، ويبدأ تدفق الوسط عبر أنابيب جميع المحاقن.
- أدخل الدبابيس المجوفة المصنوعة من الفولاذ المقاوم للصدأ، والمتصلة بأنابيب ومحقنة أوساط، في منفذ دخول الأوساط الخاص بالجهاز الموائع الدقيقة المثبت (الشكل 2-أ،هـ،ط).
- قم بتشغيل المضخة بمعدل تدفق قدره 2.4 µL/min بمجرد توصيل جميع المحاقن المثبتة على المضخة الدقيقة بالجهاز الموائع الدقيقة، يتم تثبيت الأنابيب المتصلة بفتحة مدخل الوسط الغذائي على منصة المجهر باستخدام شريط لاصق (الشكل 2I, (شريط أخضر في الخلفية).
- تأكد من وجود ارتخاء في خطوط الأنابيب للسماح بحركة المنصة أثناء التصوير. قم بتشغيل الغرفة البيئية واضبطها على 30 °Cشغّل مضخات الوسط لمدة ساعتين على الأقل قبل تحميل الخلايا، وذلك لتهيئة وحدات التصوير بالوسط.
- التقط صوراً اختبارية للمنطقة ذات الاهتمام (ROI) بعد تدفق الوسط لمدة ساعة واحدة تقريباً، وذلك لاختبار الاختلافات في المستوى البؤري عبر وحدة تصوير واحدة.
- اعتماداً على المجهر وقوة التكبير، يتم الحصول لكل حجرة على 27 × 2 صورة وثلاث شرائح z لكل موضع مع 3-8 µm التباعد، للتعويض عن الاختلافات في المستوى البؤري عبر وحدة تصوير واحدة.
- أوقف تشغيل المضخات قبل ساعة واحدة من تحميل الخلايا لتقليل الضغط وتسهيل عملية التحميل.
9. تحميل الأمشاج في الأجهزة الموائعية الدقيقة
ملاحظة: يجب إتمام عملية تحميل الخلايا لجميع الظروف في أقل من 1 h لتجنب الانقسامات الخلوية المبكرة للأمشاج. سيؤدي عدم القيام بذلك إلى تخفيف تركيز الأمشاج بسبب الخلايا الوليدة المتولدة حديثاً، وإلى تقييم غير دقيق لإجمالي العمر التكاثري. لكل ظرف ونمط جيني، يتم تحميل وحدتي تصوير للحصول على مكررين تقنيين للتحليل.
- قص أنابيب تحميل الخلايا بالطول اللازم لتوصيل مدخل تحميل الخلايا بالمحقنة. قم بتوصيل دبابيس من الفولاذ المقاوم للصدأ ومجوفة بأنابيب تحميل الخلايا. قم بتوصيل محول محقنة برأس محقنة سعة 5 mL.
- قم بتوصيل أنابيب تحميل الخلايا بمحول المحقنة في محقنة الـ 5 mL. بعد 3 h من إعادة النمو (الخطوة 7.9)، تحقق مما إذا كانت معظم الأمشاج قد بدأت في النمو. ابحث عن الأمشاج المتضخمة والبراعم الناشئة باستخدام المجهر الضوئي.
- قم بنقل 2 mL من الحالة الأولى المراد تحميلها إلى أنبوب طرد مركزي سعة 2 mL. لكل حالة، نفذ الخطوات من 9.3 إلى 9.15 واحدة تلو الأخرى. قم بإزالة الدبوس الصلب المصنوع من الفولاذ المقاوم للصدأ من وحدتي التصوير اللتين سيتم تحميلهما بخلايا من حالة معينة لتحرير الضغط.
- قم بمعالجة الخلايا المنقولة بجهاز سونيكاتور يدوي (خمس نبضات بمعدل نبضة/ثانية واحدة ودورة تشغيل 50%) مباشرة قبل سحبها في المحقنة. مرر معلق الخلايا المعالج بالسونيكاتور عبر مرشح فصل مسبق (30 µm) إلى أنبوب طرد مركزي جديد سعة 2 mL.
- قم بتحميل معلق الخلايا في محقنة الـ 5 mL المجهزة عبر الدبوس المجوف المصنوع من الفولاذ المقاوم للصدأ والأنابيب المتصلة. قم بتفريغ الهواء من المحقنة التي تحتوي على معلق الخلايا، مع التأكد من عدم بقاء أي هواء في المحقنة والأنابيب.
- ادفع مكبس المحقنة حتى تظهر قطرة صغيرة من السائل على الدبوس المجوف المصنوع من الفولاذ المقاوم للصدأ. أدخل الدبوس المجوف المصنوع من الفولاذ المقاوم للصدأ في مدخل تحميل الخلايا في الجهاز الموائع الدقيقة.
- تأكد من عدم دخول الهواء عن طريق توصيل قطرة سائلة من الدبوس المصنوع من الفولاذ المقاوم للصدأ مباشرة بمدخل تحميل الخلايا. استخدم منديل مختبري خالٍ من الوبر ملفوفاً لمسح السوائل الزائدة من جهاز الموائع الدقيقة.
- قم بتحميل الخلايا يدوياً عن طريق الضغط بعناية على مكبس المحقنة أثناء مراقبة وحدة التصوير مباشرة على المجهر باستخدام العرض المباشر. استمر في الضغط على المكبس حتى تبدأ هياكل مصائد PDMS التي على شكل حرف U في الانحناء قليلاً.
- حافظ على الضغط باستمرار وانتظر حتى تبدأ الخلايا في التدفق إلى منطقة التصوير. لا تطبق ضغطاً مفرطاً، لأن ذلك قد يؤدي إلى تحميل زائد و/أو انفصال هياكل PDMS عن الزجاج الغطائي، مما يجعل وحدة التصوير غير صالحة للاستخدام.
- حرر الضغط بمجرد أن تبدأ الخلايا في التحميل داخل المصائد وراقب كفاءة التحميل عبر وحدة التصوير. أعد تطبيق الضغط لتكرار دورة التحميل حتى يتم احتجاز عدد كافٍ من الخلايا.
- كرر دورة التحميل إذا كان عدد المصائد المشغولة أقل من 200 مصيدة. الوحدات المحملة بشكل مثالي هي التي تشغل فيها الخلايا 2/3 من المصائد، مما يوازن بين التحميل الكافي وخطر التحميل الزائد، الذي يزيد من احتمالية الانسداد أثناء التجربة.
- في حال استخدام مضخات مشتركة لوحدات تصوير مختلفة وأصبحت إحدى وحدات التصوير محملة بشكل زائد، يتم فصل أنبوب الوحدة المتأثرة عن مضخة الوسط لمنع تعطل المضخة بسبب الانسداد ولتجنب فقدان حالات تجريبية إضافية (الشكل 2J).
- قم بإزالة الدبابيس المجوفة المصنوعة من الفولاذ المقاوم للصدأ من مدخل تحميل الخلايا بمجرد تحميل عدد كافٍ من الخلايا. قم بإعادة سد الدبوس الصلب المصنوع من الفولاذ المقاوم للصدأ ببطء في منفذ مدخل تحميل الخلايا.
- تجنب إدخال الدبوس الصلب المصنوع من الفولاذ المقاوم للصدأ بعمق شديد أو بسرعة كبيرة في منفذ التحميل، لأن ذلك قد يسبب زيادة مفاجئة في الضغط داخل وحدة التصوير، مما يؤدي إلى فقدان الخلايا المحتجزة. قم بتحميل القناة الثانية لنفس الحالة، بدءاً من الخطوة 9.6.
- قم بإزالة الدبوس الصلب المصنوع من الفولاذ المقاوم للصدأ من وحدات التصوير التي سيتم تحميلها تالياً، ثم ابدأ مجدداً من الخطوة 9.3 لتحميل الحالة التالية. كرر العملية حتى يتم تحميل جميع الحالات.
- باستخدام العرض المباشر على المجهر، افحص جميع وحدات التصوير المحملة، للتأكد من التحميل الكافي والمستقر والتحقق من أن الوحدة ليست محملة بشكل زائد. بمجرد تحميل جميع وحدات التصوير المتصلة بالمضخة الدقيقة والتأكد من التحميل المناسب للخلايا، ابدأ تشغيل المضخة الدقيقة بمعدل تدفق ثابت قدره 2.4 µL/min.
- افحص جهاز الموائع الدقيقة بعناية بحثاً عن أي تسرب من منافذ التحميل التي أعيد سدها بمجرد استئناف تدفق الوسط. إذا لوحظ وجود تسرب: انزع الدبوس الصلب المصنوع من الفولاذ المقاوم للصدأ وأعد تركيبه بعناية.
- إذا تعذر إيقاف التسرب، فافصل وحدة التصوير المتأثرة عن مضخة الوسط عن طريق إزالة الأنبوب من محول محقنة الوسط سعة 20 mL (الشكل 2J). إذا كانت وحدة التصوير محملة بشكل زائد، فافصل وحدة التصوير عن مضخة الوسط عن طريق نزع الأنبوب من محول المحقنة عند رأس محقنة الوسط سعة 20 mL.
10. الحصول على الصور
ملاحظة: بمجرد تشغيل المضخات واكتمال مراقبة الجودة، يتم تحديد الأمشاج عن طريق تصوير كامل مجال الرؤية (المناطق التي تحتوي على خلايا محتجزة) لكل غرفة في قناتي FITC والمجال المضيء (brightfield) عند النقطة الزمنية t0 (الشكل 1E و الشكل 3D,E). تعتمد ظروف التصوير على النظام المحدد والاحتياج التجريبي ويمكن تكييفها وفقاً لذلك. على سبيل المثال، باستخدام عدسة شيئية 40x، يتم التقاط 2 × 27 صورة وثلاث شرائح z لكل موضع بتباعد 3–8 µm، لتعويض الاختلافات المتغيرة في المستوى البؤري عبر وحدة واحدة، وذلك في قناتي FITC والمجال المضيء. بعد التقاط صور t0، يتم إجراء تصوير بالفيديو بنظام الفاصل الزمني (time-lapse) لنفس مجال الرؤية على فترات تتراوح بين 15–20 min لمدة 72 h لتغطية كامل دورة حياة الأمشاج التكاثرية (الشكل 3D,E). يتم إجراء التصوير بالفيديو بنظام الفاصل الزمني في قناة DIC فقط لتجنب التسمم الضوئي التراكمي الناتج عن التصوير المتكرر في قناة FITC.
- بمجرد تشغيل المضخات الدقيقة، أعد التحقق من جميع مناطق الاهتمام (ROIs) والمستويات البؤرية لجميع وحدات التصوير المحملة. قم بالتقاط النقطة الزمنية الأولى (t0) في قناتي FITC وDIC لجميع مناطق الاهتمام لتحديد الأمشاج (الموجبة لـ GFP) (الشكل 1D والشكل 3C).
- بعد التقاط t0، ابدأ التصوير بنظام الفاصل الزمني (time-lapse) بفواصل زمنية تتراوح بين 15–20 min لمدة إجمالية تصل إلى 72 h، مع الالتقاط في قناة DIC فقط (الشكل 1E والشكل 3D،E). راقب الجهاز بشكل متقطع أثناء التجربة لرصد أي تسريبات تلقائية. وفي حالة ملاحظة تسريبات، افصل المحقنة المقابلة لمنع فشل المضخات على نطاق واسع أو انسكاب الوسط الغذائي داخل المجهر.
- بمجرد اكتمال التصوير بنظام الفاصل الزمني، قم بنقل البيانات ثم ابدأ في عملية التنظيف.
11. التنظيف
- أوقف تشغيل المضخات قبل 30 دقيقة من عملية التنظيف بعد اكتمال عملية التصوير بفاصل زمني (time-lapse). قم بإزالة محاقن الوسط من المضخات الدقيقة وأغلق المضخات. افصل الدبابيس المصنوعة من الفولاذ المقاوم للصدأ والمجوفة المتصلة بالأنابيب ومحقنة الوسط.
- أخرج الجهاز الموائع الدقيقة (microfluidic device) من المجهر وافصل جميع الدبابيس المصنوعة من الفولاذ المقاوم للصدأ. قم بتنظيف الزيت عن عدسة المجهر الشيئية.
- تخلص من جهاز الموائع الدقيقة والدبابيس المصنوعة من الفولاذ المقاوم للصدأ في حاويات النفايات المخصصة. قم بنقل البيانات وإغلاق المجهر.
12. تحليل العمر التكاثري للأمشاج
ملاحظة: لتقدير العمر التكاثري للأمشاج عند الانتهاء من تجربة التصوير الزمني، تتم معالجة الصور وحساب العمر التكاثري للأمشاج (الشكل 1F). تعتمد المعالجة على إعدادات المجهر والاحتياجات الخاصة بالتجربة. وباختصار، يتم دمج صور التصوير الزمني بالمجال المضيء من كل حالة (باستخدام وحدة تصوير واحدة) لتشكيل مكدس فائق (hyper-stack). وإذا لزم الأمر، يتم قص وتغيير حجم مكدس التصوير الزمني بالمجال المضيء وصور FITC عند الزمن t0 بحيث تكون إحداثيات X-Y لنقطة معينة متطابقة في جميع الصور. يتم تحليل الصور كمياً باستخدام وحدات ماكرو مخصصة شبه مؤتمتة في برنامج Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m)20,21. تتوفر ملاحظات محددة حول مدخلات الماكرو في ترويسة كل ماكرو، ويجب مواءمتها مع بيانات الإدخال الفردية. يتم قياس العمر التكاثري لـ 200 خلية لكل مكرر تقني لكل نمط جيني وحالة. وتُدمج الحسابات من مكررين تقنيين للحصول على قياسات قوية للعمر التكاثري. تُكرر التجربة للحصول على مكرر بيولوجي فردي.
نقطة توقف: يمكن إجراء تحليل الصور لتقييم العمر التكاثري للأمشاج في أي وقت مناسب بمجرد الانتهاء من الجزء التجريبي من البروتوكول.
- افتح تـ0 صورة FITC لوحدة مائعيات مجهرية محددة. اختر مجلدي الإدخال والإخراج كما هو مطلوب، ثم انقر يرجى تزويدي بالنص الإنجليزي الذي ترغب في ترجمته، وسأقوم بصياغته بدقة وفقاً للمعايير العلمية والأكاديمية المحددة..
- ارسم مستطيلاً حول المشيج الموجب لصبغة FITC والمحمل في المصيدة الموائع الدقيقة، ثم أضف المستطيل إلى مدير المناطق ذات الاهتمام (ROI manager) (اختصار ت). لا تقم بقص الصورة بشكل ملاصق للخلية؛ بل اترك هامشاً يبلغ تقريباً عرض مصيدة واحدة على كل جانب. (الشكل 1D, الشكل 3ج, و الشكل التكميلي 4).
- استمر حتى يتم إضافة جميع الأمشاج الموجبة لـ FITC إلى مدير منطقة الاهتمام (ROI manager)الشكل التكميلي 5)انتقل إلى مدير المناطق ذات الأهمية (ROI manager) وحدد جميع النقاط. انقر على المزيد و حفظ.
- احفظ قائمة المناطق ذات الاهتمام (ROI) في مجلد المخرجات. قم بسحب وإفلات الماكرو. قص يدوي لمنطقة الاهتمام (ROI) وتصدير بصيغة TIFF - فتح الصور (الملف التكميلي 4) إلى FIJI/ImageJ لفتحها.
- حدد منطقة الاهتمام (ROI) الأخيرة في القائمة وانقر تشغيل في نافذة الماكرو: قص يدوي للمنطقة ذات الاهتمام وتصدير بصيغة TIFF - فتح الصور (الملف التكميلي 4). اختر مجلد المخرجات باتباع المطالبات لبدء الماكرو.
- يبدأ الماكرو في تكرار وحفظ جميع المناطق ذات الاهتمام (ROIs) المختارة في مجلد المخرجات المحدد، ويتوقف الماكرو بمجرد تكرار وحفظ جميع هذه المناطق.
- أغلق0 صورة FITC. افتح مكدسًا فائقًا (hyper stack) للتصوير الزمني بالمجال المضيء (brightfield time-lapse) لوحدة الموائع الدقيقة نفسها. إذا لم يكن الماكرو مفتوحًا بالفعل، فقم بسحبه وإسقاطه. قص يدوي لمنطقة الاهتمام وتصدير بصيغة TIFF - صور مفتوحة (الملف التكميلي 4) في برنامج Fiji/ImageJ لفتحه.
- إذا لم تكن قائمة المناطق ذات الاهتمام (ROI) المحفوظة مفتوحة بالفعل، فقم بسحب وإفلات القائمة من الـ0 استيراد صورة FITC إلى برنامج Fiji/ImageJ لفتحها. اختر آخر منطقة اهتمام (ROI) في القائمة وانقر تشغيل على المستوى الكلي: قص يدوي لمنطقة الاهتمام (ROI) وتصدير بصيغة TIFF - فتح الصور (الملف التكميلي 4).
- اختر مجلد المخرجات باتباع المطالبات لبدء التشغيل التلقائي (macro) ثم انقر يرجى تقديم النص الذي ترغب في ترجمته.يبدأ الماكرو في تكرار وحفظ جميع مناطق الاهتمام (ROIs) المختارة في مجلد المخرجات المحدد.
- يتوقف الماكرو بمجرد تكرار وحفظ جميع مناطق الاهتمام (ROIs) المختارة. أغلق المكدس الفائق (hyper stack) للتصوير الزمني للمجال المضيء (brightfield time-lapse).
- اسحب الماكرو وأفلته توصيف يدوي لبروتين GFP، وتألق رنين لومينيسينس (RLS)، والنمط الظاهري النهائي (الملف التكميلي 5إلى Fiji/ImageJ لفتحها. انقر تشغيل في نافذة الماكرو.
- اختر مجلدي الإدخال والإخراج كما هو مطلوب، ثم انقر يرجى تزويدي بالنص المصدر المراد ترجمته.افحص الـ0 استخدام FITC للتأكد من تحميل المشيج (الخلية الموجبة لـ GFP). قارن بـ0 صورة FITC وt0 تصوير زمن انقضاء بالمجال المضيء للتأكد من أن الخلية نفسها لا تزال محملة في الـ t0 التصوير الزمني بمجال مضيء (الشكل 3ج).
- انقر يرجى تزويدي بالنص المصدر الذي ترغب في ترجمته. في نافذة المطالبة: الإجراء المطلوب (هل الخلية التي تعبر عن GFP محتجزة؟ نعم/لا) (الشكل التكميلي 6)إذا كان الـ t0 خلية FITC ليست موجبة لـ GFP، اختر 0 على نافذة المطالبة.
- إذا لم تكن الخلية المحملة في تسلسل الصور الزمني للحقل المضيء عند الزمن t0 هي نفس الخلية المحملة في صورة FITC عند الزمن t0، فاختر 0 على نافذة الأوامر. إذا كان الـ t0 خلية FITC موجبة لبروتين GFP، والخلية التي تم تحميلها في تصوير الفاصل الزمني بالمجال المضيء عند الزمن t0 هي ذاتها الخلية التي تم تحميلها عند الزمن t0 صورة FITC، اختر 1 في نافذة المطالبة (الشكل التكميلي 7). انقر يرجى تزويدي بالنص المراد ترجمته. في نافذة المطالبة بمجرد اتخاذ قرار خلية GFP.
- احسب العمر التكراري من خلال تقييم عدد الخلايا البنت التي تظهر من المشيج المحمّل قبل أن يصل إلى إما النمط الظاهري النهائي (يتوقف عن الانقسام) أو يخرج من المصيدة (يُفقد من منطقة الاهتمام ROI).
- بمجرد الانتهاء من حساب مدى الحياة التكراري، انقر فوق يرجى تزويدي بالنص المراد ترجمته. في نافذة المطالبة: إجراء مطلوب (التركيز العكسي للخلية؟)الشكل التكميلي 8)في نافذة المطالبة، حدد عدد الانقسامات التي تمت ملاحظتها (RLS) (الشكل 3D،هـ; الشكل التوضيحي التكميلي 9).
- بمجرد الإبلاغ عن حالة متلازمة تململ الساقين (RLS)، انقر على يرجى تزويدي بالنص المصدر الذي ترغب في ترجمته. في نافذة المطالبة. حدد ما إذا كانت الخلية قد وصلت إلى النمط الظاهري النهائي أو تم طردها من المصيدة قبل التوقف عن الانقسام.
- انقر يرجى تزويدي بالنص المراد ترجمته. في نافذة المطالبة: إجراء مطلوب (نهائي؟) (الشكل التوضيحي الإضافي 10)في نافذة المطالبة، اختر 0 إذا تم طرد الخلية أثناء انقسامها، قبل ملاحظة النمط الظاهري النهائي.
- في نافذة المطالبة، اختر 1 إذا تم رصد نمط ظاهري نهائي (الشكل التكميلي 11)في نافذة المطالبة، اختر “?” إذا لم يكن واضحاً.
- انقر على "موافق" (OK) في نافذة المطالبة بمجرد اتخاذ قرار المصير النهائي للخلية. انقر يرجى تزويدي بالنص المراد ترجمته، وسأقوم فوراً بتحويله إلى اللغة العربية وفقاً للمعايير العلمية والأكاديمية المحددة في التعليمات. في نافذة المطالبة: إجراء مطلوب (السبب؟) (الشكل الإضافي 12).
- إذا تم طرد الخلية قبل وصولها إلى النمط الظاهري النهائي، فاختر مصير الخلية المطرودة: "مطرودة" (ejected) = الخلية طُردت بينما لا تزال في طور الانقسام؛ أما إذا وصلت الخلية إلى النمط الظاهري النهائي، فاختر مصائر الخلايا النهائية: (أ) مطرودة/منتهية (ejected/done) = اكتسبت الخلية المورفولوجيا النهائية ولكنها طُردت في غضون 3 ساعات من آخر انقسام؛ (ب) متضخمة (enlarged) = تضخمت الخلية وتوقفت عن الانقسام؛ (ج) فشل الانقسام وتضخمت (failed division and enlarged) = فشلت الخلية في الانفصال خلال الانقسام الأخير وتوقفت عن الانقسام؛ (د) انكمشت (shriveled up) = لم تعد الخلية تنقسم وتظهر مورفولوجيا منكمشة وذابلة.الشكل التوضيحي التكميلي 13)؛ (هـ) أخرى = أي فئة أخرى لا تتوافق مع الأوصاف المذكورة أعلاه.
- انقر يرجى تزويدي بالنص الذي ترغب في ترجمته. في نافذة المطالبة بمجرد اتخاذ قرار مصير الخلية النهائية. سيتم تسجيل النتائج من جميع المطالبات تلقائياً في نافذة السجل وحفظها كملف .txt في مجلد المخرجات.
- لا تغلق نافذة السجل (Log) أثناء عملية العد. ستفتح الصورة التالية في مجلد الإدخال تلقائياً. كرر الخطوات من 12.12 إلى 12.22 حتى ينتهي البرنامج النصي (script) من معالجة جميع الصور الموجودة في مجلدات الإدخال.
النتائج
تقييم فصل العمر التكراري وكفاءة تكوين الأمشاج
لمقارنة العمر التكاثري للأمشاج الناتجة عن خلايا سلفية من أعمار مختلفة، يجب ضمان وجود فاصل عمري كافٍ ونقاء في المجموعات الخلوية. ولزيادة نقاء المجموعات الخلوية المسنة التي تم الحصول عليها لتصل إلى 90-100%، تم إجراء تعديل جوهري على بروتوكول الفصل العمري القياسي، حيث يتم إعادة تطبيق ناتج استخلاص الخلايا المسنة من عملية فرز أولى على عمود جديد لإجراء عملية فرز ثانية9. ولتقييم نقاء وعمر المجموعات الخلوية المسنة والشابة التي خضعت لعمليتي فرز، يتم إجراء صبغ لندبات التبرعم والبيوتين، ويتم تصوير 50 خلية تقريباً لكل حالة. يرتبط جلوتينات جلوتين القمح تحديداً بندبات التبرعم، وهي عبارة عن هياكل حلقية غنية بالكيتين على جدار خلية الخميرة، ويبقى أحد هذه الهياكل بعد كل عملية تبرعم، مما يكشف عن العمر التكاثري الدقيق للخلية (الشكل 1C و الشكل 4A)22. يتم تحليل صور الخلايا السابقة لتكوين الأمشاج باتباع مسار تحليل الصور الموضح في الخطوة 5 من البروتوكول.
يؤدي بروتوكول الفرز المتتالي الموصوف هنا باستمرار إلى الحصول على مجموعات خلوية شابة تحتوي على حوالي 3.63% فقط من الخلايا المبيوتنة وبمتوسط عمر تكراري يبلغ 1.16، ومجموعات خلوية هرمة تحتوي على حوالي 96.74% من الخلايا المبيوتنة وبمتوسط عمر تكراري يبلغ 8.55 (الشكل 4B،C)9. إذا كانت نقاوة أي من المجموعات الخلوية الهرمة أو الشابة، والتي يتم تقييمها بواسطة صبغ البيوتين، أقل من 80%، يتم إيقاف التجربة. في التجربة المثالية، يكون الفرق في متوسط العمر بين المجموعات الخلوية الشابة والهرمة 6 انقسامات على الأقل؛ وإذا كان الفصل أقل من 4 انقسامات، يتم إيقاف التجربة.
يتم تحليل كفاءة تكوين الأمشاج بعد 24 h في أوساط تحفيز تكوين الأمشاج. وتحت الظروف الموضحة، نجح 79.8% من الخلايا الشابة و78.89% من الخلايا المسنة في تكوين رباعيات متميزة مرئياً في النمط الجيني الضابط (الشكل 4D)9. لا تشكل الكفاءة المنخفضة لتكوين الأمشاج عائقاً صارماً لهذا البروتوكول، ولكنها ستقلل من حصيلة الأمشاج، مما يجعل الخطوات اللاحقة أكثر صعوبة وأقل قابلية للتكرار. لذلك، إذا كانت كفاءة تكوين الأمشاج أقل من 30%، يتم مضاعفة كمية الخلايا المدخلة للفرز (4 x 8 OD600) لضمان الحصول على حصيلة كافية من الأمشاج من الخلايا السلفية المسنة.
تُظهر مجتمعات الرباعيات ما بعد تكوين الأمشاج من الخلايا السليفة الشابة بشكل متكرر نقاءً بنسبة 13.38% من الخلايا المبيوتنلة ومتوسط عمر تضاعفي قدره 1.31، بينما تُظهر تلك الناتجة عن الخلايا المسنة نقاءً بنسبة 97.34% من الخلايا المبيوتنلة ومتوسط عمر تضاعفي قدره 8.17 (الشكل 4E,F)9. ويجب إجراء تقييمات إضافية إذا تغير نقاء مجتمعات الرباعيات المفرزة في نمط جيني معين بنسبة تزيد عن 20%، أو إذا انخفض متوسط عمر الرباعيات المسنة بأكثر من 3 انقسامات بالنسبة لمجتمعات الخلايا المسنة ما قبل تكوين الأمشاج (الشكل 4E,F).
باختصار، يتيح الفرز المتتالي باستخدام الخرز المغناطيسي فصلاً فعالاً للخلايا قبل الانقسام الاختزالي بناءً على العمر، مع كفاءات متقاربة في تكوين الأمشاج في كل من الخلايا الشابة (79.8%) والخلايا الهرمة (78.89%). ويتم تحليل العمر التكراري ونقاء المجموعات الخلوية مرتين: قبل تكوين الأمشاج وبعده. ويعد إعادة التحقق من الفصل العمري للرباعيات أمراً هاماً لاستبعاد احتمالية أن تتداخل طفرة معينة مع تكوين الأمشاج بطريقة تعتمد على العمر، مما يؤدي إلى استنزاف محدد للخلايا الهرمة أثناء عملية تكوين الأمشاج.
تقييم التجديد التكاثري للأمشاج
تم فرز الخلايا من النوع البري في مرحلة ما قبل تكوين الأمشاج إلى مجموعات خلوية شابة ومسنة، ثم تم تحفيز عملية تكوين الأمشاج كما هو موضح هنا. تم قياس عدد ندبات التبرعم لكل رباعية لتحديد العمر التكراري للمجموعات قبل انفصال الأمشاج واكتساب العمر التكراري للأمشاج (الشكل 5A)9. وبعد التصوير بفاصل زمني، أظهر قياس ومقارنة العمر التكراري للأمشاج المشتقة من خلايا سلف شابة ومسنة أعماراً تكرارية متوسطة متقاربة للأمشاج المشتقة من كلا المجموعتين (21 و 22 انقساماً، على التوالي؛ p = 0.982؛ الشكل 5B)، مما يؤكد أن البروتوكول الموصوف هنا يحقق التجدد المرتبط بتكوين الأمشاج.
باستخدام هذا النهج، حددنا أن تحلل المكونات الخلوية التالفة عبر الالتهام الذاتي الانتقائي ضروري لتجديد الشباب أثناء تكوين الأمشاج9. وتتراجع مسارات الالتهام الذاتي، التي تتوسط تحلل المكونات التالفة عبر الفجوة العصارية، مع تقدم العمر، مما يؤدي إلى زيادة المكونات الخلوية التالفة23,24. ويتم زيادة تعبير Atg11، وهو بروتين السقالة الرئيسي للالتهام الذاتي الانتقائي المطلوب لتجنيد آلية الالتهام الذاتي الأساسية إلى مستقبلات الالتهام الذاتي الانتقائية التي تميز شحنات محددة، بشكل ديناميكي أثناء تكوين الأمشاج9. ولاختبار ما إذا كانت عملية إزالة التلف عبر الالتهام الذاتي الانتقائي مهمة لتجديد الشباب أثناء تكوين الأمشاج، تم فرز خلايا atg11Δ في مرحلة ما قبل تكوين الأمشاج إلى مجموعات خلوية شابة ومسنة، وحُفز تكوين الأمشاج باتباع البروتوكول الموصوف هنا. وبعد تأكيد العمر التكاثري لمجموعة الرباعيات عن طريق قياس عدد ندبات التبرعم لكل رباعية (Figure 5C)9، تم فصل الرباعيات، وحُسب العمر التكاثري للأمشاج. وكشف قياس متوسط العمر التكاثري لأمشاج atg11Δ من سلائف شابة ومسنة أن الأمشاج المشتقة من خلايا السلائف المسنة كان لها عمر تكاثري أقصر بشكل ملحوظ وقابل للتكرار من الأمشاج المشتقة من خلايا سلائف atg11Δ الشابة (Figure 5D, Rep.1, p = 2 x 10⁻⁶, Rep.2, p = 3 x 10⁻⁶ مقارنة بـ Figure 5B)9. تشير هذه النتيجة إلى أن الالتهام الذاتي الانتقائي عبر Atg11 يلعب دوراً محورياً في التجديد الكامل للأمشاج المشتقة من خلايا السلائف المسنة، وتظهر أن سير العمل الموصوف هنا يمكن أن يكشف عن المكونات الضرورية لإنتاج أمشاج مجددة الشباب بالكامل.
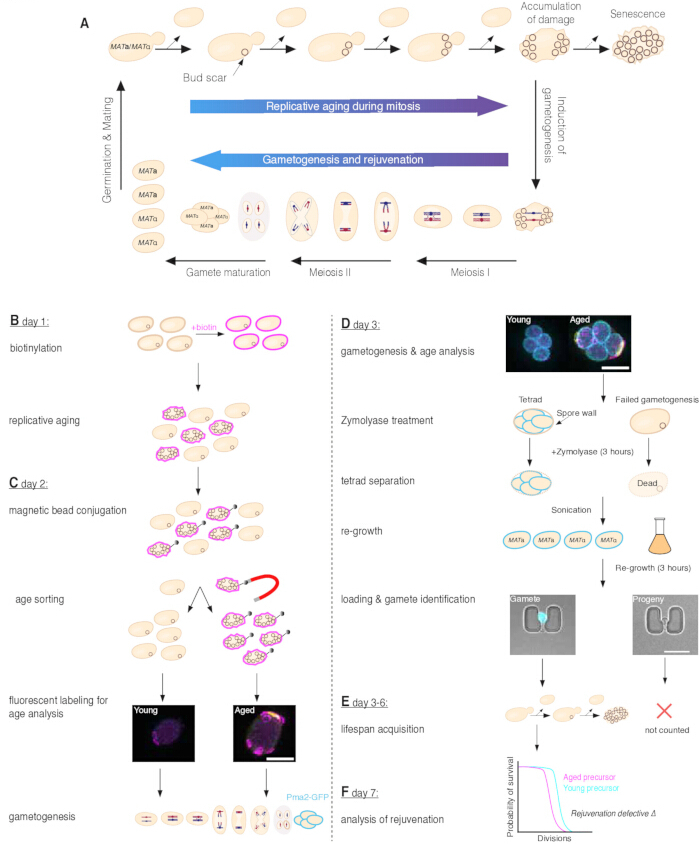
الشكل 1. التجديد الغاميتي ومسار لتقييم العمر التكاثري للأمشاج. (A) خلال النمو الخضري، تنقسم خميرة التبرعم بشكل غير متماثل. تولد الخلايا الوليدة حديثاً شابة، بينما تراكم الخلايا الأم تدريجياً أضراراً مرتبطة بالعمر وتصبح في النهاية هرمة. يشار إلى العمر التكاثري لخلية خميرة فردية بعدد ندوب التبرعم، التي تتكون بعد كل انقسام وتبقى على جدار الخلية الأم (اللوحة العلوية). يتم تحفيز تكوين الأمشاج عن طريق استنزاف العناصر الغذائية (السهم المتجه لأسفل، يميناً). خلال هذه العملية، تنقسم الخميرة ثنائية المجموعة الكروموسومية بشكل متماثل، منتجة رباعيات تحتوي على أربعة أمشاج أحادية المجموعة الكروموسومية شابة بالتساوي من نوعين تزاوجيين. يتم إعادة ضبط العمر التكاثري للأمشاج بالكامل حتى في الأمشاج المشتقة من خلايا سلف تكاثرية هرمة (اللوحة السفلية). عند إضافة العناصر الغذائية، تنبت الأمشاج، وتستأنف النمو الميتوزي، وتشكل خلايا ثنائية المجموعة الكروموسومية عند تزاوج النوعين التزاوجيين (السهم المتجه لأعلى، يساراً). (B) يتم وسم الخلايا المؤسسة بالبيوتين في اليوم 1 وتُزرع طوال الليل في وسط غني عند درجة حرارة النمو المثلى لإنتاج خلايا مؤسسة هرمة تكاثرياً وخلايا وليدة شابة. (C) في اليوم 2، يتم ربط الخلايا المؤسسة الموّسمة بالبيوتين بحبيبات مغناطيسية، يلي ذلك فرز عمري مغناطيسي لفصل الخلايا المؤسسة الهرمة عن الخلايا الوليدة الشابة. يتم تقييم فلورة البيوتين وندوب التبرعم لاحقاً لتحديد كفاءة الفرز والتحقق من الأعمار التكاثرية للمجموعات المفصولة. ثم تُحضن الخلايا طوال الليل في وسط محفز لتكوين الأمشاج لإنتاج رباعيات تعبر عن Pma2-GFP. (D) في اليوم 3، يتم تقييم كفاءة تكوين الأمشاج، ووسم البيوتين، وندوب التبرعم للتحقق من تكوين الأمشاج وتوزيعات الأعمار للمجموعات. تُعالج الرباعيات بـ Zymolyase لمدة 3 h لهضم جدار الأبواغ وتحليل الخلايا التي فشلت في إتمام عملية تكوين الأمشاج، يليه فصل ميكانيكي بواسطة الموجات فوق الصوتية. تُترك الأمشاج المفصولة لتنمو مجدداً لتسهيل الاحتفاظ بها في مصائد U الموائع الدقيقة، ثم يتم تحميلها في جهاز الموائع الدقيقة. تظهر الصور التمثيلية مشيجاً موجباً لـ Pma2-GFP (يساراً) وسلالة أمشاج سالبة لـ Pma2-GFP (يميناً) محتجزة في مصيدة U ومرئية بواسطة الحقل المضيء وفلورة Pma2-GFP (باللون السماوي). (E) يتم قياس العمر التكاثري للأمشاج باستخدام التصوير الزمني الطويل القائم على الموائع الدقيقة خلال الأيام 3-6 من البروتوكول. (F) نتيجة افتراضية بعد تحليل العمر التكاثري للأمشاج في خلفية تعاني من خلل في التجديد في اليوم 7 من البروتوكول. أشرطة المقياس = 5 µm. هذا الشكل مقتبس من Spiri et al.9. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
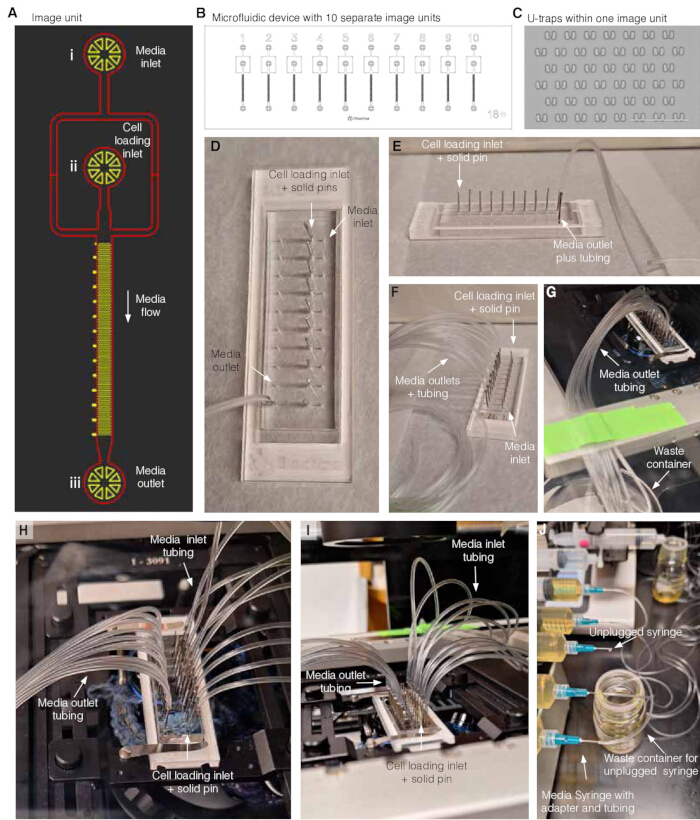
الشكل 2. تحضير الجهاز الموائع الدقيقة. (A) نظرة عامة تخطيطية لوحدة تصوير واحدة. (i) مدخل الوسط الغذائي؛ (ii) مدخل تحميل الخلايا، و(iii) مخرج الوسط الغذائي. أثناء التجربة، يتدفق الوسط الغذائي الطازج من مدخل الوسط (i) إلى مخرج الوسط (iii) بينما يكون مدخل تحميل الخلايا (ii) مسدوداً بدبوس صلب من الفولاذ المقاوم للصدأ. (B) نظرة عامة تخطيطية لجهاز موائع دقيقة واحد يحتوي على 10 وحدات تصوير منفصلة. (C) صورة لمصائد PDMS على شكل حرف U والتباعد في وحدة تصوير واحدة، شريط المقياس هو 100 µm. (D) منظر علوي لجهاز الموائع الدقيقة مع دبابيس صلبة من الفولاذ المقاوم للصدأ مسدودة في جميع مداخل تحميل الخلايا، ودبوس مجوف من الفولاذ المقاوم للصدأ بالإضافة إلى أنبوب مسدود في مخرج وسط غذائي واحد لجمع التدفق النافذ للوسط. (E) منظر جانبي لجهاز الموائع الدقيقة مع دبابيس صلبة من الفولاذ المقاوم للصدأ مسدودة في جميع مداخل تحميل الخلايا، ودبوس مجوف من الفولاذ المقاوم للصدأ بالإضافة إلى أنبوب مسدود في مخرج وسط غذائي واحد لجمع التدفق النافذ للوسط. (F) جهاز موائع دقيقة مع دبابيس صلبة من الفولاذ المقاوم للصدأ مسدودة في جميع مداخل تحميل الخلايا، ودبابيس مجوفة من الفولاذ المقاوم للصدأ بالإضافة إلى أنابيب مسدودة في جميع مخارج الوسط الغذائي لجمع التدفق النافذ للوسط. (G) جهاز موائع دقيقة مثبت على مجهر، مع دبابيس صلبة من الفولاذ المقاوم للصدأ مسدودة في جميع مداخل تحميل الخلايا، ودبابيس مجوفة من الفولاذ المقاوم للصدأ بالإضافة إلى أنابيب مسدودة في جميع مخارج الوسط الغذائي لجمع التدفق النافذ للوسط. أنابيب جمع التدفق النافذ للوسط مثبتة بشريط لاصق (شريط أخضر) على منصة المجهر وموجهة نحو حاوية جمع النفايات. (H) جهاز موائع دقيقة مثبت على مجهر، مع دبابيس صلبة من الفولاذ المقاوم للصدأ مسدودة في جميع مداخل تحميل الخلايا، ودبابيس مجوفة من الفولاذ المقاوم للصدأ بالإضافة إلى أنابيب مسدودة في جميع مخارج الوسط الغذائي، ودبابيس مجوفة من الفولاذ المقاوم للصدأ بالإضافة إلى أنابيب متصلة بمحاقن الوسط الغذائي ومسدودة في جميع مداخل الوسط. (I) جهاز موائع دقيقة مثبت على مجهر، مع دبابيس صلبة من الفولاذ المقاوم للصدأ مسدودة في جميع مداخل تحميل الخلايا، ودبوس مجوف من الفولاذ المقاوم للصدأ بالإضافة إلى أنبوب مسدود في جميع مخارج الوسط الغذائي، ودبوس مجوف من الفولاذ المقاوم للصدأ بالإضافة إلى أنبوب متصل بمحاقن الوسط الغذائي ومسدود في جميع مداخل الوسط. الأنابيب القادمة من محاقن الوسط مثبتة بشريط لاصق على منصة المجهر (شريط أخضر في الخلفية). (J) مثال على كيفية فصل محقنة الوسط الغذائي عن جهاز الموائع الدقيقة في حالة حدوث تسرب أو تحميل زائد في وحدة التصوير. تم اقتباس الأشكال 2A-C من Jo et al.15. وتم اقتباس الأشكال D-J من Spiri et al.9. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
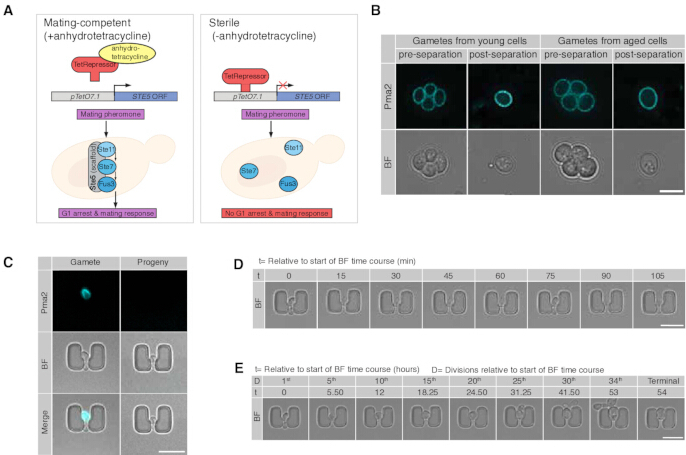
الشكل 3تحضير الأمشاج للتقييم القائم على الموائع الدقيقة لعمر الأمشاج التكاثري. (Aتمثيل تخطيطي للنظام الجيني لتحقيق العقم الشرطي. المُحفز الداخلي لـ STE5يتم استبدال البروتين السقالي الضروري لنقل الإشارة عند استشعار فرمون التزاوج بـ pTetO7.1 قطعة المحفز. في الحالة الأساسية، يرتبط بروتين كابت التتراسيكلين (TetR)، الذي يتم التعبير عنه تحت محفز تأسيسي، بـ pTetO7.1 ويثبط عملية النسخ من هذا المحفز. ويؤديت إضافة وارتباط مادة anhydrotetracycline إلى إحداث تغير بنيوي في البروتين الكابت Tet Repressor، مما يقلل من ألفته لـ pTet07.1 وبذلك، يتم رفع الكبح عن نسخـ... STE5. (B) مقاطع z فردية ممثلة لرباعيات وأمشاج شابة (اللوحة اليسرى) ومسنة (اللوحة اليمنى)، قبل وبعد الفصل على التوالي، توضح التصوير بالمجال المضيء وPma2-GFP (باللون السماوي). (ج) أمشاج نموذجية موجبة لـ Pma2-GFP (اللوحة اليسرى) وسلالة أمشاج سالبة لـ Pma2-GFP (اللوحة اليمنى) محتجزة في أجهزة قائمة على الموائع الدقيقة، مع تصوير المجال المضيء و Pma2-GFP (اللون السماوي).د) تنقسم gamete محاصرة ممثلة مرتين خلال فترة زمنية قدرها ساعتان.هـ) مشيج ممثل محتجز في وحدة تصوير مائعية دقيقة، يتم تصويره كل 5th الانقسام حتى النهاية 34th الانقسام على مدى فترة زمنية قدرها 54 ساعة. أشرطة المقياس = 5 µmتم اقتباس هذا الشكل من Spiri وآخرون.9. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
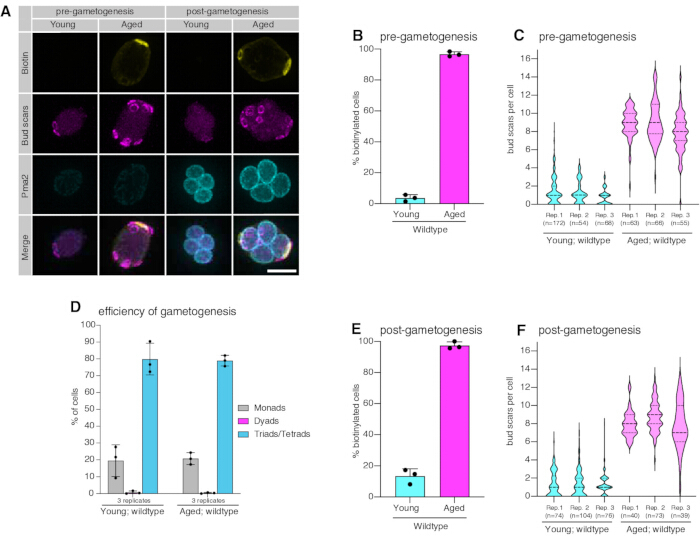
الشكل 4تقدير العمر التكراري وكفاءة تكوين الأمشاج. (A) خلايا تمثيلية ذات كثافة قصوى مسقطة تم فرزها حسب العمر في مرحلة ما قبل تكوين الأمشاج (اللوحة اليسرى)، ورُباعيات في مرحلة ما بعد تكوين الأمشاج (اللوحة اليمنى)، حيث يظهر البيوتين باستخدام الستريبتاديفيدين المسمى فلوريسنتياً (باللون الأصفر)، وندوب التبرعم الغنية بالكيتين التي تظهر باستخدام أغلوتينين جرم القمح المسمى فلوريسنتياً (باللون الأرجواني)، وPma2-GFP (باللون السماوي). (ب) تقدير كمية كسر الخلايا المبيوتينية في الخلايا الفتية (3.63 ± 2.12%، المتوسط ± الانحراف المعياري (SD)، 3 مكررات، ن = 172، و54، و68، على التوالي) ومسنين (96.74 ± 1.58 %، المتوسط ± الانحراف المعياري، 3 مكررات، n = 63 و66 و55 على التوالي) لمجموعات خلايا من النوع البري، وتمثل أشرطة الخطأ الانحراف المعياري. (سيتقدير العمر التكاثري من خلال تقييم عدد ندوب التبرعم في الخلايا الشابة (1.16 ± 0.41، المتوسط ± الانحراف المعياري، n = 3 مكررات، n = 172 و54 و68 على التوالي) ومسنّون (8.55 ± ٠.٦٦، المتوسط الحسابي ± الانحراف المعياري، 3 مكررات، حيث n = 63 و66 و55، على التوالي) لمجموعات خلايا من النوع البري. (د) تقدير كمية كسر الرباعيات في الشباب (79.8 ± ٩.٤٣٪؛ المتوسط ± الانحراف المعياري (SD)، 3 مكررات (المكرر 1 و3، العدد = 300، المكرر 2، العدد = 281) ومسنة (78.89 ± ٣.١٧٪، المتوسط ± الانحراف المعياري، 3 مكررات n = 300 لكل منها) لمجموعات الخلايا البرية بعد مرحلة تكوين الأمشاج، وتمثل أشرطة الخطأ الانحراف المعياري. (هـ) تقدير كمية جزء الرباعيات المبيوتنة في الشباب (13.38 ± 4.74%، المتوسط ± الانحراف المعياري، عدد المكررات = 3، والعدد = 74 و104 و76 على التوالي) ومسنين (97.34 ± 2.33%، المتوسط ± الانحراف المعياري (SD)، 3 مكررات، والعدد (n = 40 و73 و39، على التوالي) لمجموعات النوع البري بعد اكتمال عملية تكوين الأمشاج، وتمثل أشرطة الخطأ الانحراف المعياري (SD). (فتحديد العمر التكاثري عن طريق تقييم عدد ندبات التبرعم في الخلايا الشابة (1.31) ± 0.04، المتوسط ± انحراف معياري، 3 مكررات، n = 74 و104 و76 على التوالي) وكبار السن (8.17 ± 0.54، المتوسط الحسابي ± الانحراف المعياري، 3 مكررات، عدد العينات = 40 و73 و39 على التوالي) من مجموعات الرباعيات من النوع البري. أشرطة المقياس = 5 µmحُسبت فترات الثقة باستخدام طريقة درجة ويلسون (Wilson score method). وتشير مخططات الكمان إلى الوسيط (خطوط متصلة)، و25th و 75th المئويات (الخطوط المنقطة). تم اقتباس هذا الشكل من Spiri وآخرون.9. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
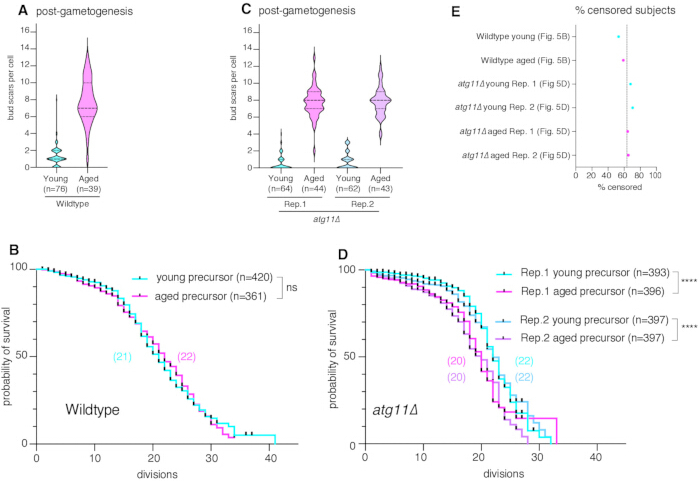
الشكل 5تحديد كمية العمر التكاثري. (Aتقدير العمر التكراري من خلال تقييم عدد ندبات التبرعم في الخلايا الفتية (1.3) ± 1.2، المتوسط الحسابي ± الانحراف المعياري، ن = 76) وأعمارهم (7.8 ± ٢.٦، المتوسط الحسابي ± الانحراف المعياري، العدد = 39) مجموعات الأمشاج من النوع البري، وهي نفس البيانات الموضحة في الشكل 4F بالنسبة للتكرار 3. (Bتحديد كمية عمر التضاعف للخلايا الشابة (متوسط العمر = 21، العدد = 420، 223 حالة خاضعة للرقابة) والخلايا الهرمة (متوسط العمر = 22، العدد = 361، 213 حالة خاضعة للرقابة، p = 0.982 مقارنةً بالأمشاج من النوع البري الشابة). تم دمج النتائج من مكررين تقنيين. (سيتحديد العمر التكراري عن طريق تقييم عدد ندوب التبرعم في atg11Δ مجموعات الرباعيات: التكرار 1، فتية (0.53 ± 0.91، المتوسط ± انحراف معياري، ن = 64) وأعمارهم (7.8 ± 1.8، المتوسط الحسابي ± الانحراف المعياري، ن = 44)؛ تكرار 2 صغار (0.82 ± ١، المتوسط الحسابي ± انحراف معياري، ن = 62) وأعمارهم (7.9 ± ١.٧، المتوسط الحسابي ± الانحراف المعياري، العدد = 43). (دتحديد كمية العمر الزمني التكراري لـ atg11Δ الأمشاج لنسختين بيولوجيتين مستقلتين: النسخة 1 الشابة (متوسط العمر = 22، العدد = 393، 267 حالة خاضعة للرقابة) والنسخة المتقدمة في السن (متوسط العمر = 20، العدد = 396، 255 حالة خاضعة للرقابة، p = ٢ × ١٠-6); تم تكرار الدراسة على مجموعتين: مجموعة الشابة (متوسط العمر = 22، العدد = 397، 280 حالة خاضعة للرقابة) ومجموعة المسنة (متوسط العمر = 20، العدد = 397، 259 حالة خاضعة للرقابة، p = 3 × 10⁻⁶ مقارنةً بالشباب). وبالنسبة لكل مكررة بيولوجية مستقلة، تم دمج أعداد المكررات التقنية لعينتين.هـنسبة الأحداث الخاضعة للرقابة عبر جميع تجارب مدى الحياة. يشير الخط المتقطع إلى المتوسط (63.4% ± 6.2 المتوسط الحسابي ± (الانحراف المعياري) للخاضعين للدراسة الذين تم رصدهم من 6 تجارب. تم تقييم الدلالة الإحصائية للاختلافات في أعمار التضاعف باستخدام اختبار لوغاريتمي الرتبة (مانتل-كوكس)؛ وتمثل علامات المراجعة على منحنيات البقاء الأحداث التي تم رصدها. تشير مخططات الكمان إلى الوسيط (الخطوط المتصلة)، و25th و 75th المئويات (الخطوط المتقطعة). p تُشير القيم إلى (ns = p > 0.05, * = p ≤ 0.05, ** = p ≤ 0.01, *** = p ≤ 0.001, **** = p ≤ 0.0001). هذا الشكل مقتبس من Spiri et al.9. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
الشكل التكميلي 1: اختيار المناطق ذات الاهتمام لتحليل ندبة البرعم. لقطة شاشة تمثيلية من برنامج ImageJ تظهر الخلايا الفردية المختارة باستخدام مناطق اهتمام (ROIs) مستطيلة، والتي تمت إضافتها إلى مدير مناطق الاهتمام (ROI Manager) لإجراء التحليل اللاحق. تظهر مناطق الاهتمام المختارة على شكل مربعات صفراء. يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 2: الإدخال اليدوي لعدد ندوب البراعم. لقطة شاشة تمثيلية من برنامج ImageJ تظهر مربع الحوار المستخدم لإدخال عدد ندوب البراعم التي تم تحديدها لكل خلية مختارة يدويًا. يتم عد ندوب البراعم عن طريق تدوير مسقط المحور Y وفحص إشارة غلوتينين تجمع القمح. يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 3: التصنيف اليدوي لوسم البيوتين. لقطة شاشة تمثيلية من برنامج ImageJ تظهر مربع الحوار المستخدم لتسجيل ما إذا كانت الخلية المختارة إيجابية أو سلبية لوسم البيوتين. تشير القيمة 1 إلى خلية إيجابية للبيوتين، وتشير القيمة 0 إلى خلية سلبية للبيوتين. يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 4: تحديد المناطق ذات الأهمية في جهاز مائع مجهري.لقطة شاشة تمثيلية من برنامج ImageJ توضح مصائد U مائع مجهرية فردية تم تحديدها باستخدام مناطق اهتمام (ROIs) مستطيلة وإضافتها إلى مدير مناطق الاهتمام (ROI Manager). تشمل كل منطقة اهتمام مصيدة U واحدة للتحليل اللاحق. يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 5: تصور لمناطق اهتمام (ROIs) مختارة في مصائد U الموائعية الدقيقة.لقطة شاشة تمثيلية من برنامج ImageJ تُظهر مناطق اهتمام مستطيلة متعددة متراكبة على الجهاز الموائعي الدقيق بعد اختيار مصائد U فردية. يتم عرض مناطق الاهتمام في وقت واحد باستخدام وظيفة "Show All" في مدير مناطق الاهتمام (ROI Manager). يرجى الضغط هنا لتنزيل هذا الملف.
الشكل الإضافي 6: تحديد الخلايا الموجبة لـ GFP في المصائد الميكروية على شكل U.لقطة شاشة تمثيلية من برنامج ImageJ توضح الأمر المستخدم لتحديد ما إذا كانت هناك خلية موجبة لـ GFP محتجزة داخل مصيدة U المختارة. تظهر صورة فلورية إلى جانب صورة الحقل المضيء لتسهيل عملية التحديد. يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 7: التصنيف اليدوي للخلايا الموجبة لـ GFP. لقطة شاشة نموذجية من برنامج ImageJ تظهر مربع الحوار المستخدم لتسجيل حالة GFP لخلية داخل مصيدة U-trap مختارة. تشير القيمة 1 إلى خلية موجبة لـ GFP، بينما تشير القيمة 0 إلى خلية سالبة لـ GFP. يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 8: الإدخال اليدوي لعمر التكرار. لقطة شاشة تمثيلية من برنامج ImageJ تظهر مربع الحوار المستخدم لإدخال عمر التكرار (RLS) لخلية فردية بعد مراجعة مجموعة صور الفاصل الزمني. يتم تحديد RLS على أنه العدد الإجمالي لانقسامات الخلايا الملحوظة. يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 9: الإدخال اليدوي لعمر التكاثر. لقطة شاشة نموذجية من برنامج Fiji/ImageJ تُظهر مربع الحوار المستخدم لإدخال عمر التكاثر (RLS) لخلية فردية بعد مراجعة مجموعة صور الفاصل الزمني بالمجهر الضوئي. يتم تسجيل RLS على أنه العدد الإجمالي لانقسامات الخلايا المرصودة. يرجى النقر هنا لتنزيل هذا الملف.
الشكل الإضافي 10: تقييم الحالة النهائية أثناء تحليل عمر التضاعف.لقطة شاشة ممثلة من برنامج Fiji/ImageJ تظهر مطالبة "النهائية؟" المستخدمة لتحديد ما إذا كانت الخلية التي تم تحليلها قد وصلت إلى نمط ظاهري نهائي أو تم طردها من المصيدة قبل التوقف النهائي. يرجى النقر هنا لتنزيل هذا الملف.
الشكل التكميلي 11: تسجيل الحالة النهائية أثناء تحليل عمر التضاعف. لقطة شاشة نموذجية من برنامج Fiji توضح اختيار قيمة الحالة النهائية بعد تحديد ما إذا كانت الفينوتيب النهائية قد لوحظت. يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 12: اختيار مصير الخلية النهائي. لقطة شاشة نموذجية من برنامج Fiji توضح الأمر المستخدم لتعيين سبب الاستبعاد أو المصير النهائي لخلية تم تحليلها. يرجى النقر هنا لتحميل هذا الملف.
الشكل التكميلي 13: تصنيف مورفولوجيا الخلايا النهائية. لقطة شاشة نموذجية من برنامج Fiji توضح اختيار النمط الظاهري النهائي، بما في ذلك تصنيف "المنكمشة" لخلية توقفت عن الانقسام وأظهرت مورفولوجيا منكمشة. يرجى النقر هنا لتنزيل هذا الملف.
الملف التكميلي 1. ماكرو Fiji لاختيار مناطق الاهتمام يدوياً وتصدير ملفات TIFF. ماكرو Fiji/ImageJ مخصص يُستخدم لاختيار خلايا فردية يدوياً كمناطق اهتمام (ROIs)، وقص مناطق الاهتمام المختارة، وتصدير الصور المقصوصة كملفات TIFF لإجراء التحليلات اللاحقة. يرجى النقر هنا لتحميل هذا الملف.
الملف التكميلي 2. ماكرو Fiji للإسقاط Z والثلاثي الأبعاد للخلية الواحدة. ماكرو Fiji/ImageJ مخصص يُستخدم لإنشاء إسقاطات ثلاثية الأبعاد وصور إسقاط Z لخلايا مقصوصة فردية لإجراء تحليلات لاحقة لندبات التبرعم ووسم البيوتين. يرجى النقر هنا لتنزيل هذا الملف.
الملف التكميلي 3. ماكرو Fiji للتوصيف اليدوي لندبات البرعم والبيوتين. ماكرو Fiji/ImageJ مخصص استُخدم لتسجيل عدد ندبات البرعم يدويًا وتصنيف الخلايا الفردية وفقًا لحالة وسم البيوتين. يرجى النقر هنا لتحميل هذا الملف.
الملف التكميلي 4. قص منطقة الاهتمام يدويًا وتصدير ملفات TIFF – ماكرو Open Images Fiji.ماكرو Fiji/ImageJ مخصص استُخدم لقص وتصدير مناطق الاهتمام المقابلة من صور FITC عند الزمن t0 ومجموعات الصور المتتابعة (hyper-stacks) للمجال المضيء، وذلك لتحليل العمر الافتراضي التكاثري للأمشاج لاحقًا. يرجى النقر هنا لتحميل هذا الملف.
الملف التكميلي 5. ماكرو Fiji للتوصيف اليدوي لـ GFP وRLS والنمط الظاهري النهائي. ماكرو Fiji/ImageJ مخصص يُستخدم لتحديد الأمشاج الموجبة لـ GFP، وتسجيل العمر التكاثري (RLS) يدويًا، وتحديد الحالة النهائية، وتصنيف الأنماط الظاهرية النهائية أو الطاردة أثناء تحليل العمر التكاثري للأمشاج. يرجى النقر هنا لتنزيل هذا الملف.
المناقشة
نقدم هنا بروتوكولاً مفصلاً لقياس مدى الحياة التكراري لأمشاج الخميرة المشتقة من خلايا سلفية ذات أعمار متفاوتة، وذلك باستخدام سير عمل عالي الإنتاجية يعتمد على الموائع الدقيقة (microfluidics) قدمه Spiri وزملاؤه9. تسرع هذه التقنية من دراسة كفاءة التجديد التكاثري (gametogenic rejuvenation) عبر خلفيات جينية متنوعة، ويمكن الاستفادة منها للحصول على رؤى ميكانيكية حول العملية المحفوظة للتجديد التكاثري. تم اكتشاف أن تكوين الأمشاج يعيد ضبط مدى الحياة التكراري في الخميرة في البداية في خلفيات السلالتين W303 و A364، باستخدام مقاييس التشريح المجهري كوسائل للقراءة7. ولم يكن من الممكن تقييم إعادة ضبط مدى الحياة التكراري عند تكوين الأمشاج في سلالة SK1، على الرغم من استخدامها البارز في دراسة تكوين الأمشاج، وذلك بسبب الصعوبات في فصل الخلايا الوليدة القليلة الأولى عن المشيج7. وخلال تطوير هذا البروتوكول، تجاوزنا هذا القصور من خلال هندسة خلفية سلالة SK1، حيث أدخلنا طفرة نقطية D368V في موضع AMN1 لتعديل انفصال الخلايا، وحذفنا FLO8 للقضاء على التلبد (flocculation)25,26. علاوة على ذلك، تم تقييد تعبير STE5، وهو بروتين ساند للإشارات ضروري لتحفيز استجابة التزاوج، بشكل شرطي عن طريق تطبيق نظام Tet-OFF المحفز بالanhydrotetracycline في الموضع الداخلي (الشكل 3A)27,28,29. يؤدي هذا إلى نقص شرطي كامل في التزاوج بين خلايا MATa و MATα، مما يسمح بإجراء التهجينات الجينية مع تجنب تحفيز استجابات التزاوج بين أمشاج MATa و MATα أثناء التجارب. وأخيراً، ولتحديد الأمشاج وتمييزها عن الخلايا الخضرية بعد نمو قصير، تم إدخال مراسل ترانزيجيني يحمل بروتين اندماجي Pma2-GFP تحت محفزه الداخلي. يتم التعبير عن Pma2-GFP بشكل خاص في مرحلة متأخرة من تكوين الأمشاج، ويتمركز في الغشاء البلازمي للمشيج، ويظل موجوداً لعدة دورات من انقسام الخلايا بعد الإنبات (الشكل 1D، الشكل 3B، C، و الشكل 4A)9. يزيد المقاييس المعتمد على الموائع الدقيقة الموصوف هنا بشكل كبير من الإنتاجية وجدوى التحقيقات في برنامج التجديد التكاثري مقارنة بمقاييس التشريح المجهري الشاقة التي تستغرق عدة أيام، والتي كانت الطريقة الوحيدة المتاحة سابقاً لقياس التجديد التكاثري كمياً. وبالاتفاق مع النتائج التي تم الحصول عليها في W303 و A364 عن طريق التشريح المجهري7، نوضح أن مدى الحياة التكراري يعاد ضبطه تماماً بعد تكوين الأمشاج في خلفية سلالة SK1. بالإضافة إلى ذلك، ومن خلال تطبيق هذه الطريقة، كشفنا أن الالتهام الذاتي الانتقائي المعتمد على Atg11 ضروري للتجديد الكامل للأمشاج (الشكل 5B، D) (بيانات مستمدة من Spiri وزملاؤه)9.
يتم إعداد وتركيب الأجهزة الموائعية الدقيقة (الشكل 2A–D) وفقاً للبروتوكول الموصوف (الخطوة 8). وقبل تركيب الجهاز الموائعي الدقيق على المجهر، يتم فحص غطاء الزجاج بعناية للتأكد من خلوه من الشقوق. يجب توخي الحذر لتجنب إتلاف غطاء الزجاج عند التعامل مع الجهاز الموائعي الدقيق. وفي حالة اكتشاف شقوق، لن يتم استخدام وحدة التصوير المتضررة لمنع تسرب الوسط إلى المجهر وتجنب عدم اتساق الضغط أثناء التجربة. ورغم أنه يمكن نظرياً الاستمرار في استخدام وحدات التصوير غير المتضررة في نفس الجهاز الموائعي الدقيق، إلا أنه يُنصح بالانتقال إلى جهاز موائعي دقيق جديد، لأن غطاء الزجاج الذي تضرر هيكلياً ينطوي على مخاطر عالية بانتشار المزيد من الشقوق أثناء التجربة. بعد ذلك، يجب فحص كل وحدة تصوير تحت المجهر للتحقق من سلامة هياكل PDMS وترابطها السليم مع غطاء الزجاج. ولتقليل مخاطر تكتل الخلايا وانسداد القنوات أثناء التجربة، يُضاف Pluronic F-127 إلى وسط النمو، ويتم تعقيم الوسط بالترشيح لإزالة الشوائب قبل بدء التجربة. يتم تمرير الوسط عبر وحدات التصوير الموائعية الدقيقة لمدة ساعتين 2 h على الأقل قبل تحميل الخلايا لضمان تحضير وحدات التصوير بالوسط بشكل كافٍ. إذا تراكمت كمية كبيرة من الشوائب عند الجزء العلوي من منطقة مصيدة U-trap في وحدة تصوير معينة، مما يعيق تحميل الخلايا وتدفق الوسط، فيُنصح باستبعاد هذه الوحدة من التجربة عن طريق فصلها عن مضخة الوسط (الشكل 2J). وبمجرد توزيع الوسط بالكامل في جميع وحدات التصوير، يتم التقاط صورة اختبار لمناطق الاهتمام (ROIs) للتحكم في اختلافات المستوى البؤري داخل وحدة التصوير الواحدة وعبر الجهاز الموائعي الدقيق بأكمله. وإذا كان الجهاز الموائعي الدقيق يعاني من ميل داخلي، يمكن للتعديلات الدقيقة في ميل المنصة أن تخفف من هذه المشكلة. وبدلاً من ذلك، يتم تصوير ثلاث شرائح z-slices لكل موضع ونقطة زمنية بفاصل z-spacing يتراوح بين 3–8 µm للتعويض عن اختلافات المستوى البؤري عبر وحدة تصوير واحدة.
لفصل الرباعيات إلى أمشاج مفردة، يتم تحضين المزارع التي تم فرزها حسب العمر بعد تكوين الأمشاج مع إنزيم Zymolyase لمدة 3 h (الشكل 1D). يقوم هذا الإنزيم بهضم جدار خلية الخميرة بشكل محدد، مما يؤدي إلى إضعاف كيس الرباعية الذي يحمي الأمشاج وتحلل الخلايا غير الأمشاجية (الشكل 1D). تكون الأمشاج المنفصلة محمية بجدرانها الخلوية الخاصة، والتي تكون أكثر مقاومة للهضم وبالتالي تمنع التحلل. بعد فصل الرباعيات، يتم فحص الأمشاج المنفصلة للتأكد من تفكك الرباعيات بشكل كافٍ والحفاظ على سلامة الأمشاج. إذا ظلت أكثر من 30% من الخلايا في شكل رباعيات سليمة، يمكن أن تساعد دورات إضافية من الموجات فوق الصوتية (sonication) في تفتيتها بشكل أكبر (الشكل 3B). ويُنصح بإيقاف التجربة والبدء من جديد باستخدام دفعة جديدة من Zymolyase إذا ظلت أكثر من 30% من الرباعيات سليمة، حيث قد تشكل تكتلات خلوية أثناء مرحلة النمو، مما قد يسبب مشكلات أثناء تحميل وتشغيل النظام الموائع الدقيقة (microfluidic system). عند الفصل، يتم تنمية مزارع الأمشاج لمدة 3 h عند 30 °C في أوساط غنية، وهي فترة كافية للسماح للأمشاج بزيادة حجمها بحيث يمكن احتجازها بسهولة في أجهزة الموائع الدقيقة، ولكنها قصيرة بما يكفي لضمان أن معظم الخلايا لم تكمل انقسامها الأول (الشكل 1D). بعد النمو، يتم فحص الخلايا تحت مجهر ضوئي للتحقق من زيادة الحجم وظهور البرعم الأول. إذا استغرق نمط جيني معين وقتًا أطول بكثير لزيادة حجم الأمشاج وبدء الانقسام، فيجب تعديل التوقيت وفقًا لذلك لضمان الاحتجاز الفعال للأمشاج.
يتم بعد ذلك تحميل الخلايا التي نمت زيادة عن الحاجة يدويًا في وحدات التصوير الموائع الدقيقة عن طريق تسليط الضغط بعناية على المحقنة مع مراقبة الوحدة عبر العرض المباشر للمجهر. يجب توخي الحذر لتجنب تسليط ضغط مفرط، حيث يمكن أن يتسبب ذلك في انفصال هياكل PDMS عن الزجاج الغطائي، مما يؤدي إلى تلف وحدة التصوير. يُطبق الضغط بشكل مستمر حتى تبدأ هياكل PDMS في الانحناء قليلاً وتبدأ الخلايا في التدفق إلى منطقة التصوير. وبمجرد أن تبدأ الخلايا في التدفق إلى جهاز التصوير، يتم تقليل الضغط أثناء مرورها عبر الوحدة، لملء المصائد الفردية. إذا تم اصطياد أقل من 200 خلية في الجولة الأولى، يتم إعادة تسليط الضغط لتكرار دورة التحميل. ستكون الوحدات المحملة بشكل مثالي هي التي تشغل الخلايا فيها 66% على الأقل من المصائد، مما يحقق التوازن بين التحميل الكافي والتحميل المفرط، الذي يزيد من خطر الانسداد أثناء التجربة. تحتوي وحدات التصوير المحملة بشكل مفرط على كميات زائدة من الخلايا والحطام فوق وداخل منطقة U-trap، مما قد يعيق تدفق الوسط في جميع أنحاء وحدة التصوير. في حالة استخدام مضخات مشتركة لوحدات تصوير مختلفة وتحميل إحدى وحدات التصوير بشكل مفرط عن طريق الخطأ، يتم فصل الوحدة المتأثرة عن مضخة الوسط لمنع توقف المضخة بسبب الانسداد، وبالتالي منع تعطيل المجموعات التجريبية الإضافية (الشكل 2J). يتم إكمال تحميل جميع الظروف في غضون 1 h لتجنب الانقسامات الخلوية المبكرة للأمشاج، مما يؤدي إلى تخفيف الأمشاج بواسطة الخلايا الوليدة المتولدة وتقييم غير دقيق لعمر التضاعف. عند اكتمال التحميل لجميع الظروف واستئناف تدفق الوسط، يتم فحص جهاز الموائع الدقيقة بعناية للتحقق من عدم وجود أي تسرب للوسط من منافذ التحميل التي أعيد سدها. إذا لوحظ تسرب، قم بإزالة الدبوس المصنوع من الفولاذ المقاوم للصدأ بعناية وأعد إدخاله في منافذ التحميل لحل المشكلة. بدلاً من ذلك، إذا تعذر إيقاف التسرب، يتم فصل وحدة التصوير عن مضخة الوسط لمنع انسكاب السائل داخل المجهر أثناء التجربة (الشكل 2J). إذا كانت وحدة التصوير محملة بشكل مفرط، كما يتضح من أعداد الخلايا والحطام حول المصائد القليلة الأولى، يتم أيضًا فصلها عن مضخة الوسط لمنع توقف المضخة أثناء التجربة بسبب زيادة الضغط المرتد الناتج عن انخفاض تدفق الوسط (الشكل 2J).
يمكن لأجهزة الموائع الدقيقة ذات المصيدة المفتوحة على شكل حرف U المخصصة والمستخدمة هنا، والمصممة خصيصاً للاستخدام مع SK1، أن تلتقط نطاقاً ديناميكياً واسعاً من عمر التضاعف مع تقليل حصر الخلايا في الحيز مقارنة بتصميمات المصائد الأخرى، مما يقلل من احتمالية حدوث التأثيرات المبلغ عنها سابقاً على طول العمر30. ومع ذلك، فإن هذا التصميم المفتوح ينطوي على عيب يتمثل في احتمال قذف الخلايا مبكراً قبل إمكانية ملاحظة الشيخوخة، ويرجع ذلك أساساً إلى الزيادة الكبيرة في حجم الخلية خلال الانقسامات القليلة الأخيرة من الحياة التضاعفية (لوحظ ذلك تحديداً في SK1 وهو أمر لا يمكن تجنبه) أو بسبب انحرافات طفيفة في الضغط داخل نظام الموائع بمرور الوقت. لذا، يجب توخي الحذر الشديد لتجنب إدخال أي هواء في نظام الموائع الدقيقة أثناء تحضير الجهاز وتحميل الخلايا. ولتجنب الانحياز عند تقييم عمر التضاعف للأمشاج، يتم عد كل مشيج تم تحميله في بداية التصوير الزمني (time-lapse) حتى يتم تحليل 200 مشيج. وتُصنف الخلايا التي تُقذف قبل الشيخوخة بدقة على أنها عينات خاضعة للرقابة (censored subjects) لأغراض التحليل. وقد وجدنا أن معدلات الرقابة متقاربة بين الأنماط الجينية (Figure 5E، العينات الخاضعة للرقابة = 63.4% ± 6.2، المتوسط ± SD)، مع عدم وجود علاقة منهجية بين تكرار القذف والأنماط الظاهرية لعمر الحياة الملاحظ. ورغم أن هذا لم يُلاحظ حتى الآن، فإننا نوصي بتكرار التجربة إذا تجاوزت معدلات القذف 80% بين الخلايا التي تم تحليلها. وبالتالي، ورغم أن قذف الخلايا يمثل مصدراً كبيراً للرقابة المتأصلة في الاختبار، ويرجع ذلك جزئياً إلى أننا نقوم بعد كل مشيج محمل حتى لو قُذف خلال الانقسامات القليلة الأولى، إلا أننا لا نرى دليلاً على أن التفاوت في القذف بين الأنماط الجينية يفسر الاختلافات المبلغ عنها في عمر الحياة. وباتباع هذا النهج، يمكن قياس عمر التضاعف بشكل متسق وقوي. ولتقليل حوادث القذف في التجارب المستقبلية، يتم حالياً تطوير واختبار أجهزة بتصميمات مصائد مبتكرة.
على الرغم من أن إنتاجية قياس إعادة ضبط مدى الحياة أثناء تكوين الأمشاج أعلى بكثير من الطريقة الموجودة سابقاً، إلا أنه يجب عد انقسامات الخلايا في كل مشيج يدوياً بواسطة عالم مدرب، مما يجعل تحليل البيانات قيداً حالياً للطريقة المعروضة. وتقدم التطورات الحديثة في نهج التعلم الآلي لأتمتة تحليل مدى الحياة التضاعفي للخميرة استراتيجية واعدة للتغلب على القيد المذكور أعلاه31. ومن الواعد بشكل خاص نهج نُشر مؤخراً يسمى BudFinder، والذي يستخدم Masked Autoencoder تم تدريبه مسبقاً بطريقة ذاتية الإشراف على بيانات تصوير للخميرة واسعة النطاق، ثم يستخدمه لتحسين نموذج transformer للكشف المباشر عن أحداث انقسام الخلايا32. يقلل هذا النهج بشكل كبير من عدد أحداث الانقسام التي تتطلب تعليقاً توضيحياً يدوياً لتحسينات النموذج مقارنة بالطرق السابقة. ومن المثير للاهتمام أن الكم الهائل من البيانات التي تم إنتاجها وتوضيحها بالفعل باستخدام البروتوكول الموصوف هنا مناسب تماماً لنهج مماثل يمكن أن يؤتمت تحليل مدى الحياة التضاعفي للأمشاج في المستقبل ويتغلب على القيد الحالي. علاوة على ذلك، وبالنسبة للتطبيقات المستقبلية، يمكن دمج هذا البروتوكول بسهولة مع المؤشرات الحيوية المعتمدة وأنظمة التعبير المتطورة لتحديد الآليات والعوامل الجزيئية التي تتوسط تجديد الخلايا أثناء تكوين الأمشاج في S. cerevisiae، مما يتيح رؤى جديدة حول هذه العملية المحفوظة.
الإفصاحات
يصرح المؤلفون بعدم وجود تضارب في المصالح.
شكر وتقدير
نتوجه بالشكر إلى الأعضاء الحاليين والسابقين في مختبري Brar وÜnal على المناقشات النقدية والملاحظات المقدمة حول المخطوطة. هذا العمل مدعوم بزمالة التنقل من الصندوق الوطني السويسري للعلوم P500PB_214421 الممنوحة لـ S.S.، بينما يتلقى G.A.B. الدعم من تمويل المعاهد الوطنية للصحة (R01AG071869)، وقد حصل T.L.S. على دعم من منحة Longevity Impetus المقدمة من مجموعة Norn ومؤسسة Hevolution ومؤسسة Rosenkranz. كما يتلقى E.Ü. الدعم من تمويل المعاهد الوطنية للصحة (R01AG071801) ومعهد Astera.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| نظام زجاجة تخزين/ترشيح فراغي سعة 1000 mL | Corning | 431098 | غشاء PES معقم، مسام 0.22 µm وقطر 54.5 cm2. يحفظ في درجة حرارة الغرفة. |
| حقنة سعة 20 mL | Becton, Dickinson and Company (BD) | 302830 | حقنة Luer-Lok سعة 20 mL. تحفظ في درجة حرارة الغرفة. |
| حقنة سعة 5 mL | Becton, Dickinson and Company (BD) | 14-829-45 | حقنة Luer-Lok سعة 5mL، تحفظ في درجة حرارة الغرفة. |
| Ampicillin | Alpha Teknova | A9510 | يحفظ في درجة حرارة -20 °C بعد إعادة الذوبان في الماء. |
| خرز مغناطيسي مضاد للبيوتين | Miltenyi Biotechnology | 130-097-046 | يحفظ في درجة حرارة 4 °C. |
| β-mercaptoethanol | MilliPORE SIGMA | M625-250mL | يحفظ في درجة حرارة 4 °C. |
| BSA | MilliPORE SIGMA | A4503-100G | يحفظ في درجة حرارة 4 °C. |
| محول Clay Adams Intramedic Luer-Stub | Becton, Dickinson and Company (BD) | 427565 | عيار 23، يحفظ في درجة حرارة الغرفة. |
| كوفيتات (أنابيب قياس) | Bio Rad | 2239955 | كوفيتات بوليسترين تستخدم لمرة واحدة ذات حجم شبه ميكروي. تحفظ في درجة حرارة الغرفة. |
| إيثانول | NA | various | |
| EZ-Link Sulfo-NHS-LC-biotin | ThermoFisher Scientific | 21335 | بيوتين لوسم الخلايا المؤسسة للشيخوخة التكرارية |
| برنامج Fiji | https://fiji.sc/ | NA | الإصدار: Fiji/ImageJ (ImageJ2, V. 2.14.0/1.54m) |
| ستربتافيدين موسوم فلورياً | ThermoFisher Scientific | S11225 | مرافق Alexa Fluor 546، يحفظ في درجة حرارة -20 °C في حصص منفصلة. |
| جلوتينين حبوب القمح موسوم فلورياً | ThermoFisher Scientific | W11263 | مرافق Alexa Fluor 350، يحفظ في درجة حرارة -20 °C في حصص منفصلة. |
| فورمالدهيد | ThermoFisher Scientific | F79-1 | 37%، يحفظ في درجة حرارة 4 °C. |
| وسط تحفيز تكوين الأمشاج | NA | تم تحضيره داخلياً وفقاً للوصفة القياسية | 2% أسيتات البوتاسيوم، ومكملات أحماض أمينية وأمبيسيلين (40 mg/L أدينين، 40 mg/L يوراسيل، 10 mg/L هيستيدين، 10 mg/L ليوسين و 10 mg/L تريبتوفان، 100 μg/mL أمبيسيلين) |
| جلايسين | ThermoFisher Scientific | BP381-1 | 100%، تركيز 200 proof. يحفظ في درجة حرارة الغرفة. |
| دبوس مجوف من الفولاذ المقاوم للصدأ | iBiochips | HSP-100 | رقم القطعة: القطر الخارجي 0.28”، القطر الداخلي 0.016”، الطول 0.500”، يحفظ في درجة حرارة الغرفة. |
| مجهر فلوري مقلوب | NA | NA | |
| مضخات حقن Legato 200 | kdScientific | 788200 | تحفظ في درجة حرارة الغرفة. |
| حامل متعدد بلاستيكي أو زجاجي 6/10 لـ Legato 200/210 | kdScientific | 788300 | يحفظ في درجة حرارة الغرفة. |
| مجهر ضوئي | NA | NA | |
| أنابيب منخفضة الالتصاق | USA Scientific | 1415-2600 | تحفظ في درجة حرارة الغرفة. |
| أعمدة LS | Miltenyi Biotechnology | 130-042-401 | تحفظ في درجة حرارة الغرفة. |
| أجهزة ميكروفلويديك | iBiochips | ADU-10, (AD-Chips of the #18++) | تحفظ في درجة حرارة الغرفة. |
| أنابيب طبية خالية من DEHP | iBiochips | MTB-100 | القطر الداخلي = 0.202”، القطر الخارجي = 0.060”، سمك الجدار = 0.20”، تحفظ في درجة حرارة الغرفة. |
| PBS | NA | تم تحضيره داخلياً وفقاً للوصفة القياسية | تحضير 1L من: PBS pH 7؛ PBS pH8، PBS pH 8 + 100 mM جلايسين، PBS pH 7.4 + 0.5% BSA |
| Pluronic F-127 | MilliPORE SIGMA | P2443 | يحفظ في درجة حرارة الغرفة. |
| مرشح ما قبل الفصل | Miltenyi Biotechnology | 130-041-407 | حجم المسام 30 µm |
| أطقم بدء وفصل QuadroMACS | Miltenyi Biotechnology | 130-091-051 | تحفظ في درجة حرارة الغرفة. |
| دبوس صلب من الفولاذ المقاوم للصدأ | iBiochips | SSP-200 | القطر الخارجي 0.027”، القطر الداخلي 0.500”، يحفظ في درجة حرارة الغرفة. |
| جهاز سونيكيتور (موجات فوق صوتية) | Branson | 100-132-1623R & 101-135-066R | |
| مطياف ضوئي | NA | NA | |
| مدور أنابيب | NA | NA | |
| Y+A8+2:29+2:31+A8+2+2:33 | قاعدة بيانات سلالات الخميرة Brar-Ünal | pÜB42275 | trp1::pPma2-Pma2-eGFP::TRP1, ste5::NatR-pTet07.1-STE5, ura3::pRNR2-TetR-Tup1, pTetO7.1-TetR::URA3, flo8Δ, Amn1D368V |
| سلالة الخميرة 2 | قاعدة بيانات سلالات الخميرة Brar-Ünal | pÜB48561 | atg11Δ::KanMX, trp1::pPma2-Pma2-eGFP::TRP1, ste5::NatR-pTet07.1-STE5, ura3::pRNR2-TetR-Tup1, pTetO7.1-TetR::URA3, flo8Δ, Amn1D368V |
| YPD (YEP + 2% جلوكوز، مضاف إليه Trp و Ura) | NA | تم تحضيره داخلياً وفقاً للوصفة القياسية | YPD (1% مستخلص خميرة، 2% ببتون، 2% جلوكوز، 22.4 mg/L يوراسيل، و 80 mg/L تريبتوفان). |
| Zymolyase 100T | MP Biomedicals | 8320932 | يحفظ في درجة حرارة -20 °C في حصص منفصلة بعد إعادة الذوبان في الماء. |
المراجع
- Denoth Lippuner A, Julou T, Barral Y. Budding yeast as a model organism to study the effects of age. FEMS Microbiol Rev. 2014;38(2):300-25.
- Higuchi-Sanabria R et al. Role of asymmetric cell division in lifespan control in Saccharomyces cerevisiae. FEMS Yeast Res. 2014;14(8):1133-46.
- Hughes AL, Gottschling DE. An early age increase in vacuolar pH limits mitochondrial function and lifespan in yeast. Nature. 2012;492(7428):261-5.
- Nyström T, Liu B. Protein quality control in time and space—links to cellular aging. FEMS Yeast Res. 2014;14(1):40-8.
- Neiman AM. Sporulation in the budding yeast Saccharomyces cerevisiae. Genetics. 2011;189(3):737-65.
- Sing TL, Brar GA, Ünal E. Gametogenesis: exploring an endogenous rejuvenation program to understand cellular aging and quality control. Annu Rev Genet. 2022;56(1):89-112.
- Ünal E, Kinde B, Amon A. Gametogenesis eliminates age-induced cellular damage and resets life span in yeast. Science. 2011;332(6037):1554-7.
- Ünal E, Amon A. Gamete formation resets the aging clock in yeast. Cold Spring Harb Symp Quant Biol. 2011;76:73-80.
- Spiri S et al. A role for selective ER autophagy in gametogenic rejuvenation revealed by high-throughput lifespan profiling. Nat Commun. 2026. doi:10.1038/s41467-026-77993-0.
- Koch BA, Staley E, Jin H, Yu HG. The ESCRT-III complex is required for nuclear pore complex sequestration and regulates gamete replicative lifespan in budding yeast meiosis. Nucleus. 2020;11(1):219-36.
- Lee MB et al. Defining the impact of mutation accumulation on replicative lifespan in yeast using cancer-associated mutator phenotypes. Proc Natl Acad Sci U S A. 2019;116(8):3062-71.
- Mortimer RK, Johnston JR. Life span of individual yeast cells. Nature. 1959;183(4677):1751-2.
- Chen KL, Crane MM, Kaeberlein M. Microfluidic technologies for yeast replicative lifespan studies. Mech Ageing Dev. 2017;161(Pt B):262-9.
- Jin M et al. Divergent aging of isogenic yeast cells revealed through single-cell phenotypic dynamics. Cell Syst. 2019;8(3):242-53.e3.
- Jo MC et al. High-throughput analysis of yeast replicative aging using a microfluidic system. Proc Natl Acad Sci U S A. 2015;112(30):9364-9.
- Li Y et al. A programmable fate decision landscape underlies single-cell aging in yeast. Science. 2020;369(6501):325-9.
- Li Y et al. Multigenerational silencing dynamics control cell aging. Proc Natl Acad Sci U S A. 2017;114(42):11253-8.
- Liu P, Young TZ, Acar M. Yeast Replicator: a high-throughput multiplexed microfluidics platform for automated measurements of single-cell aging. Cell Rep. 2015;13(3):634-44.
- Thayer NH et al. The Yeast Lifespan Machine: a microfluidic platform for automated replicative lifespan measurements. bioRxiv. 2022;2022.02.14.480146.
- Schindelin J et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-82.
- Spiri S. Fiji macros for microscopy analysis of gametogenic rejuvenation [Internet]. Zenodo; 2026. Available from: [https://doi.org/10.5281/zenodo.22004193](https://doi.org/10.5281/zenodo.22004193)
- Cabib E, Bowers B. Chitin and yeast budding: localization of chitin in yeast bud scars. J Biol Chem. 1971;246(1):152-9.
- Mizushima N, Levine B, Cuervo AM, Klionsky DJ. Autophagy fights disease through cellular self-digestion. Nature. 2008;451(7182):1069-75.
- Rubinsztein DC, Mariño G, Kroemer G. Autophagy and aging. Cell. 2011;146(5):682-95.
- Kobayashi O, Suda H, Ohtani T, Sone H. Molecular cloning and analysis of the dominant flocculation gene FLO8 from Saccharomyces cerevisiae. Mol Gen Genet. 1996;251(6):707-15.
- Fang O et al. Amn1 governs post-mitotic cell separation in Saccharomyces cerevisiae. PLoS Genet. 2018;14(10):e1007691.
- Azizoglu A, Brent R, Rudolf F. A precisely adjustable, variation-suppressed eukaryotic transcriptional controller to enable genetic discovery. eLife. 2021;10:e69549.
- Choi KY, Satterberg B, Lyons DM, Elion EA. Ste5 tethers multiple protein kinases in the MAP kinase cascade required for mating in S. cerevisiae. Cell. 1994;78(3):499-512.
- Bellí G et al. An activator/repressor dual system allows tight tetracycline-regulated gene expression in budding yeast. Nucleic Acids Res. 1998;26(4):942-7.
- Gao Z et al. Comparative analysis of yeast replicative lifespan in different trapping structures using an integrated microfluidic system. Adv Mater Technol. 2020;5(12):2000655.
- Aspert T, Hentsch D, Charvin G. DetecDiv, a generalist deep-learning platform for automated cell division tracking and survival analysis. eLife. 2022;11:e79519.
- Nguyen P et al. BudFinder: a masked auto-encoder vision transformer framework for yeast budding detection and lifespan quantification. PLoS Comput Biol. 2026;22(5):e1013700.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً