يتيح هذا البروتوكول عزلًا موثوقًا للخلايا العضلية القلبية البطينية الحية من سمكة الكيلي فيش السنوية قصيرة العمر، Nothobranchius furzeri، عبر مختلف الفئات العمرية، مما يوفر خلايا مناسبة لدراسات تثبيت الرقعة للخلية الكاملة (whole-cell patch-clamp) لبحث إعادة تشكيل القلب المرتبط بالعمر.
مقالة منهجية
عزل الخلايا العضلية القلبية البطينية من سمكة الكيلي فيش السنوية Nothobranchius furzeri لتسجيلات تثبيت الرقعة للخلية الكاملة
في هذه المقالة
ملخص
الملخص
تظل الخلايا العضلية القلبية العاملة والمعزولة هي النهج المعياري لدراسة الفسيولوجيا الكهربائية للقلب. وتسمح تحضيرات الخلية الواحدة بالتقصي المباشر والقياس الدقيق للتيارات الأيونية وجهد الفعل دون التعقيدات الهيكلية الموجودة في أنسجة القلب السليمة. وقد برز سمك Nothobranchius furzeri (سمك الكيلي فيش الأفريقي الفيروزي) سريعًا ككائن نموذجي بارز في أبحاث علم الشيخوخة نظرًا لقصر عمره الاستثنائي وتشابه آليات الشيخوخة لديه مع الثدييات، بما في ذلك البشر. ويجمع هذا النوع بين المزايا العملية مثل صغر الحجم، وانخفاض تكاليف الرعاية، ودورة الحياة السريعة، مع أهمية تطبيقية في الأبحاث الانتقالية. ويظهر N. furzeri تدهورًا يعتمد على العمر في النشاط الحركي، والإدراك، ووظائف الأعضاء، وتراكمًا للعلامات الجزيئية للشيخوخة، وحساسية تجاه العلاجات الدوائية التي تعدل طول العمر والصحة العامة. ومع ذلك، فإن تقصي التدهور الوظيفي للقلب المتقدم في السن يتطلب طريقة موثوقة للحصول على خلايا حية وعالية الجودة مناسبة لتقنيات الخلية الواحدة الدقيقة. قامت هذه الدراسة بتحسين بروتوكول وُصف سابقًا لعزل الخلايا العضلية القلبية لسمك Danio rerio لضمان الاستخلاص المتسق لخلايا عضلية قلبية سليمة من أسماك N. furzeri الفتية والهرمة على حد سواء. يصف هذا البروتوكول عزل الخلايا العضلية القلبية البطينية من N. furzeri والمحسن خصيصًا لتقنية تثبيت الرقعة للخلية الكاملة (whole-cell patch clamp). يوضح المقال كيفية استئصال القلب بكفاءة، وإجراء التفكيك الإنزيمي لعضلة القلب عن طريق التروية الراجعة، وتخزين الخلايا العضلية القلبية المعزولة. ونناقش اختيار الإنزيمات المطلوبة لهضم المصفوفة خارج الخلية والروابط بين الخلايا دون المساس ببنية القنوات الأيونية. وتعد الخلايا العضلية القلبية المعزولة حديثًا مناسبة للمقاييس الفسيولوجية الكهربائية عالية الدقة، بما في ذلك تسجيلات جهد الفعل وقياسات التيارات الأيونية الرئيسية الداخلة والخارجة عبر المجموعات العمرية المختلفة. كما يتطرق المقال إلى سمات عزل الخلايا العضلية القلبية في الأسماك التي تختلف عن إجراءات العزل القياسية في الثدييات.
المقدمة
ينتج التدهور الوظيفي للقلب المرتبط بالعمر عن إعادة تشكيل هيكلية وجزيئية وكهرومغناطيسية، مما يؤدي مجتمعة إلى ضعف الاحتياطي القلبي وزيادة القابلية للإصابة باضطرابات نظم القلب1. ولفهم الآليات التي تقود شيخوخة القلب على المستوى الخلوي، تعد تقنية تثبيت الرقعة للخلية الكاملة (whole-cell patch clamp) أداة تجريبية لا غنى عنها؛ فهي تتيح التقييم الكمي المباشر لتيارات الأيونات عبر الغشاء الفردية وحركيتها، بالإضافة إلى جهود الفعل (AP)، مما يوفر رؤية حول التغيرات المحددة في التيارات الأيونية التي تكمن وراء خلل وظيفة عضلة القلب المرتبط بالعمر. ويتطلب استقصاء هذه الآليات نماذج فقارية موثوقة لشيخوخة القلب. وفي السنوات الأخيرة، برز سمك الكيلي فيش الفيروزي الأفريقي (Nothobranchius furzeri) كنموذج واعد لدراسة شيخوخة القلب نظراً لقصر دورة حياته الطبيعية2,3. وقد كشفت الدراسات الجزيئية والنسيجية الأولية عن وجود تشابهات في عمليات الشيخوخة بين Nothobranchius والثدييات. كما أثبتت الأبحاث التي أجرتها مجموعات أخرى أن N. furzeri يمتلك السمات الأساسية لشيخوخة القلب لدى الثدييات، بما في ذلك تآكل التيلوميرات، وانخفاض محتوى الحمض النووي للميتوكوندريا وتعبير الإنزيمات المضادة للأكسدة، والتغيرات الهيكلية والكهرومغناطيسية في عضلة القلب، وتراكم علامات الشيخوخة مثل الليبوفوسين وارتفاع نشاط β-galactosidase4,5,6.
ومع ذلك، وبالرغم من الأهمية المتزايدة لسمكة N. furzeri في أبحاث القلب والأوعية الدموية، فإن التوصيف الفيزيولوجي الكهربائي المفصل على مستوى الخلية الواحدة لا يزال محدوداً بسبب تحديات تقنية مستمرة. إذ يعتمد الحصول على تسجيلات عالية الجودة باستخدام تقنية تثبيت الرقعة (patch clamp) بشكل صارم على عزل خلايا عضلية قلبية وظيفية تحافظ على سلامتها الهيكلية، وقنوات أيونية سليمة، ومورفولوجيا غير مفرطة الانقباض. وفي حين أن بروتوكولات التفكيك الإنزيمي للخلايا العضلية القلبية في الثدييات راسخة، فإن عزل خلايا عضلية قلبية حيوية من قلوب الأسماك لا يزال صعباً نظراً لبنية الأنسجة غير الثديية، وانخفاض العائد الخلوي نسبياً، وصغر حجم القلب7,8. وتتمثل القيود الرئيسية لهذا الإجراء في الصعوبة التقنية لإدخال القنيات في القلب بشكل صحيح، وحساسية التحضير للتغيرات الطفيفة في المعاملة الإنزيمية. فأي خلل في تدفق التروية يؤدي إلى تدهور ملحوظ في كل من جودة الخلايا وكميتها. علاوة على ذلك، فإن الانحرافات الطفيفة في تركيز الإنزيم أو وقت الهضم يمكن أن تؤثر بشكل كبير على حيوية الخلايا وجودة التسجيلات الفيزيولوجية الكهربائية اللاحقة. كما يجب مراعاة عمر الحيوان؛ فعلى الرغم من أن قلوب الأسماك الأكبر سناً تتطلب تركيزات إنزيمية أعلى قليلاً وأوقات هضم أطول بسبب زيادة محتواها من ألياف الكولاجين والأرومات الليفية2، إلا أن المبادئ العامة للعزل تظل ثابتة، مع تفاوت تركيزات الإنزيمات وأوقات التعرض في حدود 10% لتحقيق أفضل النتائج.
وبناءً على ذلك، يعد وجود بروتوكول عزل إنزيمي مفصل وقابل للتكرار بدرجة عالية شرطاً أساسياً للتقدم في أبحاث الفيزيولوجيا الكهربائية حول الشيخوخة القلبية في نماذج الأسماك. وعلى الرغم من وجود بعض التشابهات المورفولوجية في الأبعاد الخطية، فإن عزل الخلايا العضلية القلبية من N. furzeri يتطلب عدة تعديلات جوهرية مقارنة ببروتوكول Danio rerio. تتضمن الإجراءات التقليدية لعزل الخلايا من قلب سمكة الزيبرا غمر القلب السليم في محلول إنزيمي لفترة طويلة نسبياً7,8,9. ومع أن هذا النهج ينتج خلايا حيوية، إلا أنه قد يكون عدوانياً للغاية بالنسبة لقلب Nothobranchius وقد يؤدي إلى هضم إنزيمي مفرط. تضمن هذه الطريقة تدفقاً مستقراً للمحاليل مباشرة إلى غرف القلب، مما يوفر غسيلاً أكثر كفاءة للدم من القلب ويتيح معالجة إنزيمية أكثر دقة ورفقاً. يستعرض هذا المقال منهجية مطورة لعزل خلايا عضلية قلبية حيوية ومناسبة لتقنية تثبيت الرقعة (patch clamp) من N. furzeri، مع معالجة التعديلات الرئيسية اللازمة لضمان تسجيلات فيزيولوجية كهربائية عالية الجودة.
البروتوكول
أُجريت الدراسة على أسماك N. furzeri من سلالة GRZ. استُخدمت أسماك يافعة ناضجة جنسياً من كلا الجنسين تتراوح أعمارها بين 1.5 و2 شهراً (العدد N = 19، كتلة الجسم = 0.71 g ± 0.36 g) لتسجيل جهود الفعل والتيارات الأيونية في خلايا عضلة القلب البطينية المعزولة. تم تربية وتوفير الأسماك من قبل معهد A.N. Severtsov للإيكولوجيا والتطور التابع للأكاديمية الروسية للعلوم. حُفظت الحيوانات في أحواض مائية عند درجة حرارة 24 °C ± 1 °C تحت دورة ضوء/ظلام مدتها 12 ساعة في خزانات مياه سعتها 60–100 L. بلغت كثافة الحيوانات 10–20 حيواناً لكل خزان وفقاً للتوصيات المنشورة مسبقاً10.
مبدأ عزل الخلايا العضلية القلبية من *N. furzeri* تعتمد هذه الطريقة على طريقة عزل الأسماك الكلاسيكية الموصوفة سابقاً، والتي تم تكييفها لتناسب الأسماك الصغيرة.11,12أُجريت جميع التجارب وفقاً لدليل رعاية واستخدام حيوانات التجارب (المعاهد الوطنية للصحة في الولايات المتحدة) وتوجيه الاتحاد الأوروبي 2010/63/EU. وقد تمت الموافقة على البروتوكول التجريبي من قبل لجنة أخلاقيات البيولوجيا بجامعة لومونوسوف موسكو الحكومية (طلب رقم №202-أ، تمت الموافقة عليها خلال اجتماع لجنة أخلاقيات البيولوجيا №169-d المنعقدة في 27.02.2025). وتُدرج الكواشف والمعدات المستخدمة في جدول المواد.
1. تحضير المحاليل
- قم بتحضير Ca2+محلول عزل خالٍ من [المادة] يحتوي على (بتركيز ملليمول لكل لتر): 100 NaCl، و10 KCl، و1.2 KH2أمر شراء4، 4 كبريتات المغنيسيوم (MgSO₄)4، و50 تورين، و20 جلوكوز، و10 HEPES. اضبط الرقم الهيدروجيني إلى 6.9 باستخدام NaOH في درجة حرارة الغرفة (24 °Cقم بإجراء عملية العزل باستخدام محلول ملحي في درجة حرارة الغرفة. ولا يلزم أكسجة المحلول لإتمام عملية العزل.
ملاحظة: يمكن تخزين محلول العزل في 4 °C لمدة ٣-٤ أيام في زجاجة. - قم بتحضير 3 مل من المحلول الإنزيمي بناءً على Ca2+محلول خالٍ، يحتوي على 0.8 مجم/مل-1 كولاجيناز النوع 1A، 0.5 مجم/مل-1 تريبسين، و0.8 مجم/مل-1 ألبومين المصل البقري (BSA). أضف الإنزيمات مباشرة قبل إجراء عملية العزل للحفاظ على النشاط الإنزيمي.
ملاحظة: قد تتطلب تركيزات الإنزيمات تعديلاً، نظراً لتفاوت نشاط الإنزيم بين التشغيلات المختلفة. - قم بتبريد 50-100 ملل من ماء الصنبور مسبقاً في ثلاجة حتى درجة حرارة +4 °Cيُستخدم الماء المبرد لتسكين الآلام لدى الأسماك.
2. تحضير نظام العزل
- ثبّت أسطوانتي محقنتين سعة 10 mL على حامل على ارتفاع 35 cm تقريباً.
- وصّل أنابيب سيليكون (d = 8 mm) بالأسطوانات، ثم وصّل نهاياتها الحرة باستخدام صمام إيقاف تسريب ثلاثي الاتجاهات.
- املأ أحد الأنابيب بمحلول العزل الخالي من Ca2+ والآخر بالمحلول الإنزيمي. تأكد من عدم وجود فقاعات هواء في الأنابيب، لأنها تعيق التدفق وتقلل من جودة العزل. أغلق التدفق.
- املأ إبرة توزيع قياس 32 G بالمحلول الخالي من Ca2+ باستخدام محقنة إنسولين سعة 1 mL لتجنب وجود فقاعات هواء عند طرف الإبرة.
- ثبّت الإبرة المعبأة في النهاية الحرة للصمام ثلاثي الاتجاهات.
- باستخدام معجون تثبيت، ثبّت الإبرة في طبق بتري سعة 100 mm بحيث تكون موازية للمستوى السفلي.
- ضع طبق بتري المتصل بنظام التروية تحت المجهر الستيريو وثبّته بمشابك المسرح ومعجون التثبيت (الشكل 1A).
3. التشريح وعزل القلب
- قم بتجهيز الأدوات الجراحية: زوجان من مقاص وملاقط جراحة العيون المجهرية، وصينية تشريح تحتوي على أربع إبر طبية.
- أخرج مياه الصنبور المبردة مسبقاً من الثلاجة واغمر السمكة فيها بسرعة. انتظر حتى تتوقف أغطية الخياشيم عن الحركة.
تنبيه: تأكد من توقف حركة الغطاء الخيشومي لضمان التخدير الكافي قبل المتابعة. - أخرج السمكة من الماء، وضعها على صينية التشريح بحيث يكون الجانب الظهري للأعلى، ثم اقطع الحبل الشوكي باستخدام مقاص جراحة العيون.
- اقلب السمكة على ظهرها وثبتها في الصينية باستخدام الإبر. ثبت الرأس والذيل وأغطية الخياشيم، مع إبقاء أغطية الخياشيم مثبتة للخلف في وضع مفتوح تماماً لتوفير مساحة أكبر.
- أحدث شقاً عرضياً في الصفاق. مدد الشق طولياً حتى المحور الرئيسي للجسم، مع رفع الجلد بلطف بعيداً عن الأعضاء الحشوية باستخدام الملاقط. استمر في الشق حتى حافة الفك السفلي وثبت حواف الجلد إلى اليمين واليسار (الشكل 1B).
- حدد موقع البطين والبصلة الشريانية. أمسك البصلة الشريانية بالملاقط في أبعد نقطة ممكنة عن البطين وارفعها بلطف خارج الجسم. دون تحرير الملاقط، اقطع في الاتجاه الذيلي للبطين للحفاظ عليه سليماً.
- انقل القلب المعزول إلى طبق بتري تحت المجهر الستيريو. ثبت طرف القُنَيّة في البطين عن طريق وضعها أولاً في البصلة الشريانية، ثم تمريرها بعناية عبر الصمام الأبهري دون إتلاف الأنسجة المحيطة. يمكن تحقيق عملية القنينة بنجاح في > 90% من القلوب.
- ثبت البصلة الشريانية في القُنَيّة باستخدام رباط (الشكل 1C).
ملاحظة: تصلح شعرة بشرية (d = 50–70 µm) كرباط، حيث إن خيوط الخياطة القياسية تكون سميكة جداً بالنسبة للقلب الصغير.
4. عزل الخلايا العضلية القلبية
- افتح الصنبور ثلاثي الاتجاهات للسماح بالتدفق من الأسطوانة التي تحتوي على محلول خالٍ من Ca2+. عند التنفيذ بشكل صحيح، يمتلئ البطين بالمحلول ويتمدد. تم ضبط معدل التدفق على 43 µL min-1.
- قُم بقص بقايا الأذين والجيب الوريدي باستخدام مقصات الجراحة المجهرية دون إتلاف جدران البطين.
- أجرِ تروية للقلب لمدة 10–12 min مع مراقبة انتظام التدفق. اضغط برفق على أنبوب السيليكون لإيصال نبضة عابرة من المحلول تؤدي إلى تمدد التربيقات البطينية وغسل الدم المتبقي. يُستدل على نجاح عملية الغسل بحدوث توقف قلبي وتوقف تدفق الكريات الحمراء تحت المجهر الستيريو.
- قم بتحويل الصنبور لتوجيه المحلول الإنزيمي إلى البطين. أجرِ التروية لمدة 4–6 min. تحقق من المعالجة الإنزيمية بصرياً من خلال تفكك سلامة جدار البطين وتساقط شظايا عضلية قلبية صغيرة.
تنبيه: تجنب أخذ عينات أو نقل سائل التروية إلى مجهر مقلوب للفحص، لأن ذلك قد يؤدي إلى فقدان المادة الخلوية أو تلفها ميكانيكياً ومقاطعة المراقبة المستمرة لجودة التروية. من الأفضل الاعتماد على علامات العزل الناجح الموصوفة أعلاه، والتي تكون مرئية بوضوح تحت المجهر الثنائي. - أضف كمية صغيرة (300–400 µL) من المحلول الخالي من Ca2+ إلى طبق زراعة أنسجة مقاس 35 mm. افصل البطين عن البصلة الشريانية وانقله إلى الطبق.
- قم بتقطيع البطين باستخدام مقصات دقيقة، ثم قم بتفتيت الأنسجة برفق عن طريق السحب والضخ المتكرر باستخدام ماصة ميكروية سعة 100 µL مزودة بطرف مقطوع.
- انقل معلق الخلايا إلى أنبوب سعة 1500 µL. افحص عينة تحت مجهر مقلوب بتكبير منخفض (10×). قدِّر بصرياً كثافة الخلايا العضلية القلبية المخططة والمستطيلة في مجال الرؤية. إذا كان المجال مزدحماً، مع وجود العديد من الخلايا المستطيلة المتداخلة (>50 لكل مجال 10×)، أضف محلولاً خالياً من Ca2⁺ لتقليل كثافة الخلايا وتجنب الازدحام المفرط في غرفة التسجيل. اترك الخلايا تستقر عند 4 °C لمدة 40–50 min قبل التسجيل.
ملاحظة: يمكن الاحتفاظ بالخلايا عند 4 °C خلال فترة الاستقرار؛ واستخدمها للتسجيلات في غضون 8 h من عملية العزل.
5. تسجيلات تثبيت الرقعة للخلية الكاملة
- قم بتحضير المحاليل خارج الخلوية وداخل الخلوية لمختلف التيارات الأيونية وتسجيلات جهد الفعل المدرجة في الجدول 1.
- اسحب ماصات الرقعة (patch pipettes) من شعيرات زجاجية من البوروسيليكات رقيقة الجدران (بدون فتيلة) باستخدام سحب رأسي، ثم املأها بالمحلول داخل الخلوي. يجب أن تكون مقاومة الماصة المملوءة 2.0–3.0 MΩ لجميع تكوينات التسجيل.
- املأ خزان التروية بمحلول الحمام خارج الخلوي وقم بتجهيز الخطوط لإزالة جميع فقاعات الهواء قبل وضع الخلايا في غرفة التسجيل.
- أضف حجماً صغيراً (30–40 µL) من معلق الخلايا العضلية القلبية المعزولة إلى غرفة التسجيل ذات القاع الزجاجي واترك الخلايا تترسب لمدة 5–10 min.
- قم بتثبيت الماصة في مرحلة الرأس الخاصة بالمضخم. وباستخدام التوجيه المجهري، اخفض الماصة نحو الخلية العضلية القلبية المستهدفة بواسطة الملاعب الدقيق (micromanipulator) حتى يلامس الطرف الغشاء، وهو ما يظهر على شكل انبعاج بسيط وزيادة في مقاومة الماصة.
- طبق شفطاً سلبياً خفيفاً لإنشاء ختم GΩ عالي المقاومة، والذي يتكون عادةً في غضون ثوانٍ قليلة.
- اضبط جهد الحفاظ على -80 mV. قم بتمزيق الغشاء بسلسلة من نبضات الشفط القصيرة. بعد إنشاء تكوين الخلية الكاملة (whole‑cell configuration)، قلل من العوابر السعوية وقم بتعويض سعة الخلية ومقاومة التوالي (مقاومة الوصول) باستخدام دوائر التعويض في المضخم.
- قم بتعويض هذه التيارات السعوية باستخدام أدوات التحكم في سعة الخلية (Cell capacitance) ومقاومة التوالي (Series resistance) في المضخم. اضبط تحكم سعة الخلية لتقليل العابر السعوي الرئيسي، ثم اضبط تحكم مقاومة التوالي لتقليل التجاوز (overshoot) المتبقي حتى يتم إلغاؤه إلى حد كبير، ويصبح تيار الخط القاعدي مسطحاً.
- اقبل فقط الخلايا التي تبلغ مقاومة الوصول المقدرة بعد التعويض ≤10–12 MΩ لتسجيل جهود الفعل والتيارات الأيونية. ابدأ في تسجيل جهود الفعل أو التيارات الأيونية، مع إضافة الحاصرات المحددة المدرجة في الجدول 2 قبل التسجيل عند الحاجة.
- سجل باستخدام برنامج الحصول على بيانات تثبيت الرقعة (patch clamp acquisition software) الذي يسمح بتكوين بروتوكولات تحفيز مخصصة لكل تيار مستهدف. تظهر بروتوكولات تثبيت الجهد المستخدمة في هذه الدراسة في الشكل 2.
النتائج
يوفر هذا البروتوكول خلايا عضلية قلبية بطينية فردية عصوية الشكل من N. furzeri، وهي مناسبة لتسجيلات تثبيت الرقعة للخلية الكاملة (whole-cell patch clamp) عالية الدقة. يُحكم على نجاح عملية العزل أولاً من خلال مورفولوجيا الخلايا وجودة الختم، ثم يتم التأكد وظيفياً من خلال القدرة على تسجيل جهود فعل مستقرة وكل تيار أيوني رئيسي مع الاعتماد الجهدى والسعة المتوقعين. تم الحصول على التسجيلات النموذجية أدناه من أسماك N. furzeri صغيرة السن، وهي تحدد القيم المرجعية التي تشير إلى خلية سليمة ومثبتة جيداً. وعادة ما تشير الانحرافات عن هذه المعايير إلى عزل غير مثالي، وهي موصوفة بجانب كل معيار.
مورفولوجيا الخلية وتكوين الختم
تبدو الخلايا العضلية القلبية البطينية الحيوية لـ N. furzeri مستطيلة وشبيهة بالعصيات مع غشاء ساركوليما أملس وسليم مورفولوجياً (الشكل 3). وفي بعض الخلايا، يمكن تمييز تخطيط عرضي باهت تحت المجهر الضوئي، رغم أنه لم يظهر بوضوح في كل خلية؛ لذا، تم استخدام الغشاء الأملس السليم والمورفولوجيا المستطيلة الشبيهة بالعصيات كمعايير أساسية لاختيار الخلايا للتسجيل. وتُشكل هذه الخلايا بسهولة سدداً عالية المقاومة (>1 GΩ) وتتحمل تمزق الغشاء. في المقابل، تُعد الخلايا المستديرة، أو المنكمشة، أو الحبيبية، أو المتورمة علامات على الإفراط في الهضم أو التلف الميكانيكي: فهي تسد بشكل ضعيف، وتفقد شحنتها بسرعة، ويجب استبعادها. وتحتفظ الخلية السليمة بجهد غشائي مستقر في حالة الراحة وتظهر تسريباً أدنى عند جهد التثبيت -80 mV.
خصائص تسجيل تثبيت الرقعة
أُجريت تسجيلات تثبيت الرقعة للخلية الكاملة (Whole‑cell patch‑clamp) عند درجة حرارة 22–24 °C باستخدام مضخم تثبيت الرقعة. تم أخذ عينات الإشارات بتردد 10 kHz مع استخدام مرشح تمرير منخفض عند 1–2 kHz. ضُبط كسب المخرج (α) على ×0.5 لتحسين دقة الإشارة على المحول الرقمي. تم تعويض مقاومة التوالي بنسبة 70%–80%؛ مع تأخير قدره 10 µs. استُبعدت التسجيلات إذا تجاوزت مقاومة الوصول المقدرة 10–12 MΩ أو تغيرت بنسبة تزيد عن ~10% أثناء التسجيل. وبالنسبة لتسجيلات جهد الفعل والتيارات الأيونية، لم يتم تطبيق طرح التسرب الخطي.
استُبعدت الخلايا من التحليل إذا استوفت أيًا من المعايير التالية: جهد الغشاء الراكن أقل سلبية من −70 mV في وضع تثبيت التيار (current‑clamp mode)؛ عدم القدرة على تكوين سداد جيجا (gigaseal) مستقر (>1 GΩ)؛ مقاومة الوصول >10–12 MΩ بعد التعويض؛ التناقص السريع للتيارات الأيونية أثناء التسجيل؛ أو وجود تلف شكلي (مظهر مستدير، أو محبب، أو مفرط الانكماش).
جهد الفعل (التحكم الموجب للحيوية)
توفر جهود الفعل المسجلة في وضع تثبيت التيار (current-clamp mode) التقييم الأكثر مباشرة للحيوية الكهربائية لخلية عضلية قلبية معزولة. يتم تحفيز جهود الفعل (APs) باستخدام نبضات تيار مزيلة للاستقطاب مدتها 1 ms (بشدة 0.4-1 nA، أي أعلى بنسبة ~30% من عتبة التحفيز). يتم ضبط تردد التحفيز على 0.3 Hz. تُسجل جهود الفعل بعد ~5 min، بمجرد أن يصل شكل الموجة إلى حالة مستقرة وثابتة. في خلية عضلية قلبية معزولة جيداً من سمكة N. furzeri الصغيرة، يكون جهد الغشاء الراحي (RMP) مستقراً وقريباً من -85 mV (الشكل 4B). ويتجاوز جهد الفعل في مرحلة التصاعد ليصل إلى حوالي +30 mV، مما يعطي صعوداً واضحاً وفق مبدأ "الكل أو لا شيء" (الشكل 4A). وتشمل الخصائص النموذجية لجهد الفعل قيمة APD90 تبلغ ~530 ms، وقيمة APD50 تبلغ ~460 ms، وسرعة صعود قصوى (dV/dtmax) تبلغ ~50 V s-1. ويشير جهد الغشاء الراحي المزيل للاستقطاب (أقل سلبية من حوالي -70 mV)، أو انخفاض أو غياب التجاوز، أو تباطؤ سرعة الصعود، أو عدم القدرة على الحفاظ على إطلاق متكرر بسعة ومدة ثابتتين في أغلب الحالات، إلى خلية تالفة أو غير مثبتة جيداً، وبالتالي لا يمكن استخدامها لتقييم خصائص جهد الفعل.
تيار الصوديوم السريع (INa)
يُعد تيار الصوديوم السريع أساساً لمرحلة الصعود في جهد الفعل (AP)، وهو مؤشر حساس لسلامة الغشاء وجودة التثبيت. عند استخدام المحاليل القائمة على Cs+ الموضحة في الجدول 1، يتم تسجيل INa كتيار داخلي كبير وسريع التنشيط والتثبيط (الشكل 5A). وفي الخلايا العضلية القلبية الشابة والسليمة، يصبح INa قابلاً للكشف بالقرب من -60 mV، ويصل إلى ذروة كثافة تبلغ حوالي -13 pA pF−1 عند حوالي -30 mV، وينعكس بالقرب من +20 mV (الشكل 5B). كما يتناقص ثابت الزمن للتثبيط من ~8 ms عند -50 mV إلى ~2 ms عند -10 mV، ويكون جهد نصف التثبيط بالقرب من -70 mV13 (الشكل 5C،D). ويشير الانخفاض الملحوظ في سعة ذروة التيار، أو انزياح جهد الانعكاس أو عدم تحديده بدقة، أو بطء وتشوه حركية التنشيط/التثبيط إلى عدم كفاية التحكم في الجهد (خطأ في المقاومة التسلسلية) أو تضرر سلامة الغشاء وليس العزل في حد ذاته.
تيارات الكالسيوم (ICaL و ICaT)
سُجّلت باستخدام محاليل تيار الكالسيوم (جدول 1), N. furzeri تُظهر الخلايا العضلية القلبية تيار كالسيوم داخلي صافٍ يتكون من مكونين. يبدأ هذا التيار في التنشط عند حوالي -60 ميلي فولت، مما يشير إلى وجود مكون من النوع T (ICaTبالإضافة إلى تيار النوع L السائد (ICaL)، ويصل إلى ذروة كثافة تبلغ حوالي -7 pA pF−1 بين -10 ملي فولت و0 ملي فولت (الشكل 6ب). يتم تأكيد هوية المكونات دوائياً: 10 µM يمنع النيفيديبين (nifedipine) التيار جزئيًا، بينما 100 µM يؤدي إلى تثبيط شبه كامل (الشكل 6أ). ومن المهم ملاحظة أن الـ 100 µM استُخدم تركيز النيفيديبين فقط في تجارب ضابطة محددة للتحقق من أن التيار المتبقي بعد 10 µM يُظهر النيفيديبين حساسية كاملة تجاه التركيزات الأعلى، وبالتالي يمكن تحديده على أنه Iتوموجرافيا الحاسوبية (CaT)بالنسبة للتسجيلات الروتينية القياسية، 50 µM كافٍ لحجب التيار الشبكي I بالكاملكالسيوم الحالي. إن الـ ICaL يُعرَّف المكون على أنه تيار ناتج عن جهد تثبيت قدره -50 مللي فولت، و ICaT يتم الحصول عليه كفرق بين التيار المسجل عند -90 ميلي فولت والتيار المعزول ICaL (الشكل 6ج،ديشير وجود تيار داخلي واضح ومحدد، وحساس للنيفيديبين (nifedipine)، مع وصف جهد التنشيط وجهد ذروة التيار، إلى أن قنوات الكالسيوم محفوظة بشكل جيد.
تيارات البوتاسيوم ذات المقوم المتأخر (IKr و IKs)
يؤكد وجود تيارات البوتاسيوم الخارجة أن آلية إعادة الاستقطاب تظل سليمة وظيفياً بعد عملية العزل. وفي ظل الظروف الدوائية (الجدول 2)، يؤدي إزالة الاستقطاب إلى -40 mV وما فوق إلى تحفيز تيار خارجي في جميع الخلايا السليمة. ويمكن تمييز مكونين باستخدام حاجبات انتقائية: مصحح التأخير البطيء (IKs)، الحساس لـ chromanol 293B (20 µM)، ومصحح التأخير السريع (IKr)، الحساس لـ E4031 (1 µM) (الشكل 7A,B). وفي الخلايا العضلية للأسماك الصغيرة، يصل IKs وكذلك IKr إلى كثافة تبلغ حوالي 1 pA pF−1 عند جهود إزالة الاستقطاب القوية (الشكل 7C,D). إن وجود كلا مكوني مصحح التأخير، اللذين يلعبان دوراً رئيسياً في إعادة استقطاب البطين البشري ولكن مساهمتهما أقل في النماذج القياسية للقوارض14، يعمل كتحقق أساسي من أن الخلية المسجلة هي خلية عضلية بطينية من N. furzeri ذات تيارات إعادة استقطاب سليمة.
تيار المقوم الداخلي الخلفي (IK1)
يحدد تيار المقوم الداخلي الخلفي جهد الغشاء وقت الراحة، ويتم تقييمه بسهولة باستخدام بروتوكول منحدر الجهد من +60 إلى -120 mV (الشكل 7E). في الخلية السليمة، ينعكس IK1 بالقرب من -80 mV، وهو ما يتوافق مع جهد الغشاء وقت الراحة (RMP) المقاس في وضع تثبيت التيار. وعند جهود أعلى من جهد الانعكاس، يظهر IK1 حدبة خارجية مميزة، تصل ذروتها إلى عدة pA pF−1 (الشكل 7F). ويشير جهد الانعكاس البعيد عن -80 mV أو وجود تسرب مستمر كبير إلى سوء الإحكام أو تلف في الغشاء.
وبشكل عام، يُعتبر التحضير ناجحاً عندما ينتج خلايا متطاولة وشكلها عصوي مع أغشية ملساء وسليمة تشكل سدادات جيجا أوم (gigaohm seals) وتظهر شكل جهد الفعل المرجعي وتوقيعات التيار الموصوفة أعلاه. ويؤكد الحصول على عدة خلايا من هذا النوع من قلب واحد أن التفكيك الإنزيمي قد حافظ على سلامة الغشاء والمجموعة الكاملة من القنوات الأيونية القلبية المطلوبة للدراسة الفيزيولوجية الكهربائية اللاحقة.
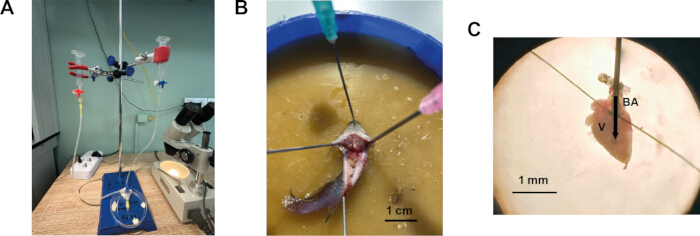
الشكل 1: إجراء عزل الخلايا العضلية القلبية البطينية من قلب سمكة N. furzeri. (أ) نظام عزل الخلايا العضلية القلبية المعدل للأسماك الصغيرة. (ب) سمكة مثبتة في صينية التشريح، بحيث يكون الجانب البطني للأعلى، مع شق الصفاق عرضياً وطولياً. (ج) قلب سمكة N. furzeri بعد تركيب القُنطرة وتثبيته لعملية التروية. BA – البصلة الشريانية، V – البطين. يشير السهم إلى اتجاه تدفق المحلول إلى البطين. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
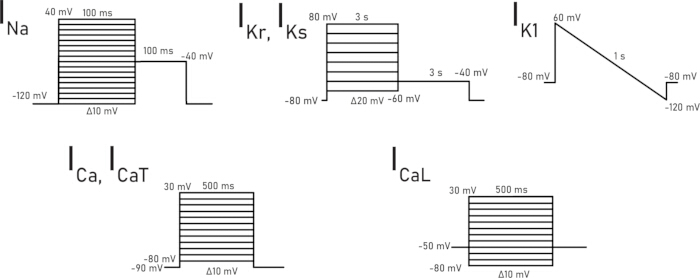
الشكل 2: بروتوكولات تثبيت الجهد المستخدمة لتسجيل كل تيار أيوني محدد. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
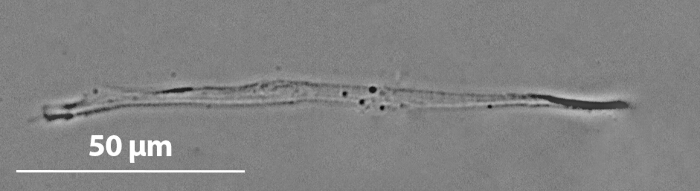
الشكل 3: صورة مجهرية نموذجية لخلية عضلية قلبية بطينية من سمكة N. furzeri صغيرة السن. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
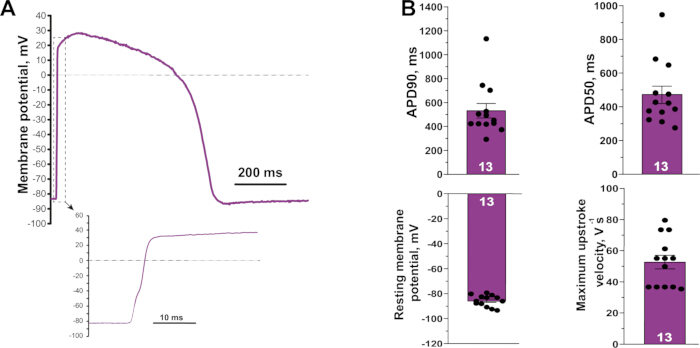
الشكل 4: جهد فعل نموذجي تم تسجيله من خلية عضلية قلبية بطينية لسمكة N. furzeri صغيرة. (أ) شكل موجة جهد الفعل. يوضح الجزء المدرج الصعود السريع على مقياس زمني موسع. (ب) خصائص جهد الفعل المقاسة من خلايا عضلية قلبية معزولة صغيرة (جهد الغشاء في حالة الراحة، وAPD50، وAPD90، وأقصى سرعة صعود). (N = 7, n = 13). القيم ممثلة كمتوسط ± S.E.M. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
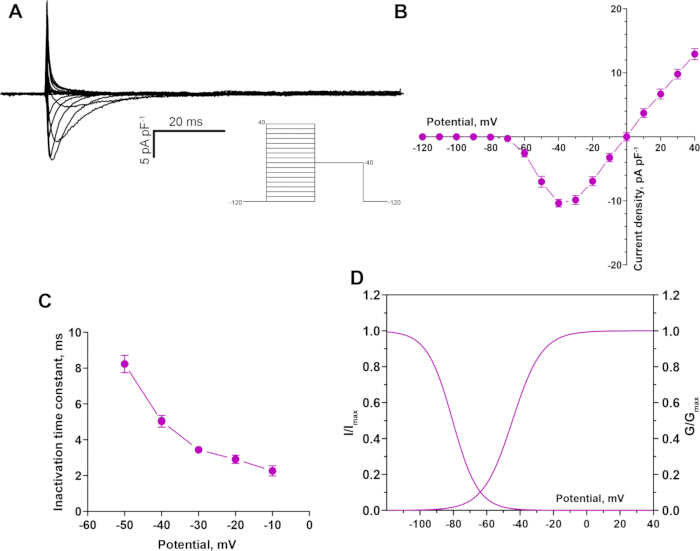
الشكل 5: تيار الصوديوم السريع (INa) المسجل من خلية عضلية قلبية بطينية شابة من نوع N. furzeri. (أ) تسجيل نموذجي لـ INa. (ب) العلاقة بين التيار والجهد لـ INa، حيث يبدأ التنشيط بالقرب من -60 mV مع وصول الذروة بالقرب من -30 mV. (ج) الاعتماد الجهدِي لثابت الزمن الخاص بالتثبيط. (د) منحنيات التنشيط والتثبيط في الحالة المستقرة. (N = 5, n = 11). يتم تمثيل القيم كمتوسط ± S.E.M. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
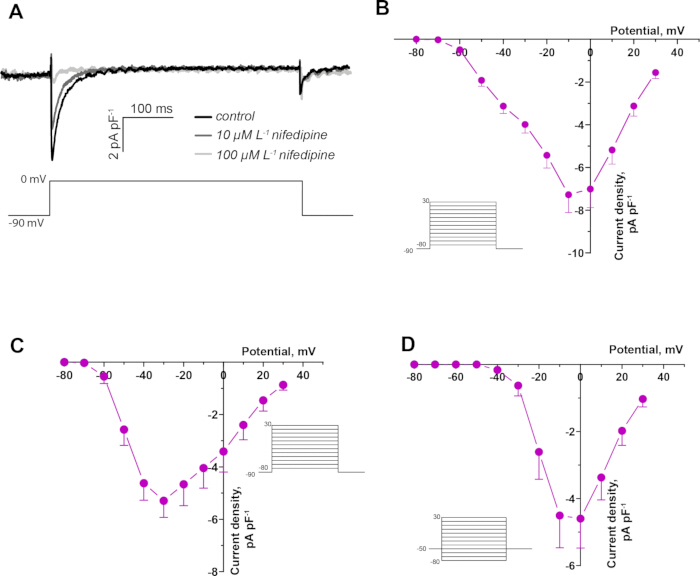
الشكل 6: تيارات الكالسيوم في خلية عضلة قلبية بطينية شابة من N. furzeri. (أ) تسجيل ممثل لصافي تيار الكالسيوم في الحالة الضابطة وفي وجود 10 µM و 100 µM من النيفيديبين في خلية عضلة قلبية بطينية شابة من N. furzeri. (ب) العلاقة بين التيار والجهد لصافي تيار الكالسيوم، حيث يتم التنشيط عند حوالي -60 mV مع وصول الذروة عند حوالي -10 mV (N = 5, n = 11). (ج) العلاقة بين التيار والجهد لمكون النوع T (ICaT) (N = 3, n = 6). (د) العلاقة بين التيار والجهد لمكون النوع L (ICaL) (N = 5, n = 7). القيم ممثلة كمتوسط ± S.E.M. يرجى النقر هنا لعرض نسخة أكبر من هذا الشكل.
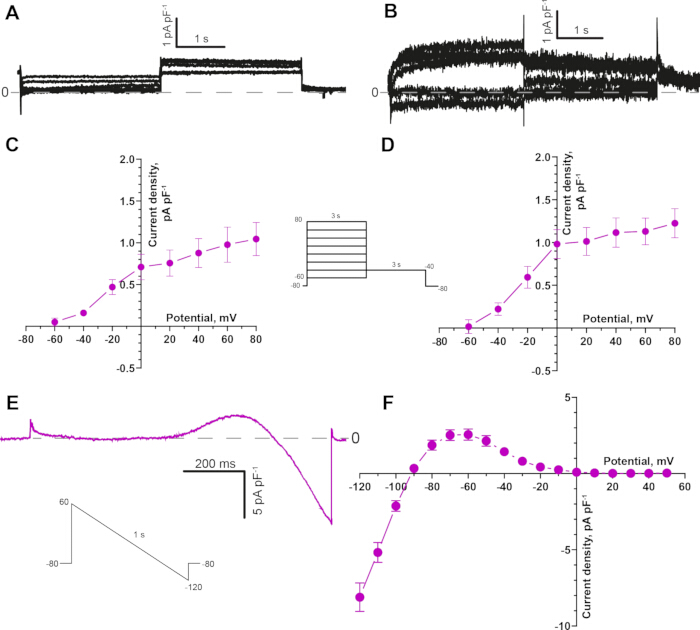
الشكل 7: تيارات البوتاسيوم في الخلايا العضلية القلبية البطينية الشابة لسمكة N. furzeri. (A) تسجيل نموذجي لتيار المقوم المتأخر البطيء (IKs)، تم عزله بوجود E4031 بتركيز (1 µM) لحجب IKr. (B) تسجيل نموذجي لتيار المقوم المتأخر السريع (IKr)، تم عزله بوجود chromanol 293B بتركيز (20 µM) لحجب IKs. (C) العلاقة بين التيار والجهد لتيار IKs (N = 5, n = 9). (D) العلاقة بين التيار والجهد لتيار IKr (N = 5, n = 10). (E) تسجيل نموذجي لتيار IK1 تم تسجيله باستخدام بروتوكول منحدر جهد تنازلي من +60 mV إلى -120 mV. (F) العلاقة بين التيار والجهد لتيار IK1، حيث تنعكس بالقرب من -80 mV (N = 5, n = 18). القيم ممثلة كمتوسط ± الخطأ المعياري للمتوسط (S.E.M.). يرجى الضغط هنا لعرض نسخة أكبر من هذا الشكل.
| اسم المحلول | الكاشف والتركيز (mM) |
| المحلول خارج الخلوي لجهد الفعل وتيارات البوتاسيوم | 150 NaCl, 3 KCl, 1.2 MgCl2, 1.8 CaCl2, 10 glucose, 10 HEPES; pH 7.4 معدل بواسطة NaOH |
| المحلول داخل الخلوي لجهد الفعل وتيارات البوتاسيوم | 140 KCl, 1 MgCl2, 5 EGTA, 4 MgATP, 0.03 Na2GTP and 10 HEPES; pH 7.2 معدل بواسطة KOH |
| المحلول خارج الخلوي لتيار الصوديوم | 20 NaCl, 123 CsCl, 1 MgCl2, 1.8 CaCl2, 10 glucose and 10 HEPES; pH 7.2 معدل بواسطة CsOH |
| المحلول داخل الخلوي لتيار الصوديوم | 5 NaCl, 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTP and 15 TEA; pH 7.2 معدل باستخدام CsOH |
| المحلول خارج الخلوي لتيار الكالسيوم | 150 NaCl, 3 CsCl, 1 MgCl2, 1.8 CaCl2, 10 glucose and 10 HEPES; pH معدل إلى 7.2 بواسطة NaOH |
| المحلول داخل الخلوي لتيار الكالسيوم | 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0.03 Na2GTP and 15 TEA; pH 7.2 معدل بواسطة CsOH. |
الجدول 1: تكوين المحاليل خارج الخلوية وداخل الخلوية لتسجيل جهد الفعل والتيارات الأيونية باستخدام تقنية تثبيت الرقعة (patch-clamp).
| تسجيل التيار | تركيز المادة الحاجبة (μM) | |
| 1. | جهد الفعل | لا تتطلب وجود مواد حاجبة |
| 2. | IKr | 50 نيفيديبين، 20 كرومانول 293B |
| 3. | IKs | 50 نيفيديبين، 1 E4031 |
| 4. | IK1 | 50 نيفيديبين، 20 كرومانول 293B، 1 E4031 |
| 5. | صوديوم (Na) | 50 نيفيديبين |
| 6. | ICaT | 1 تترودوتوكسين |
| 7. | ICaL | 1 تت رودوتوكسين |
الجدول 2: الحاجبات الفارماكولوجية المضافة إلى المحاليل خارج الخلوية للتسجيل الانتقائي لتيار أيوني معين.
المناقشة
يمثل العزل الناجح للخلايا العضلية القلبية البطينية الحية من N. furzeri تقدماً منهجياً يسمح بالتوصيف الفيزيولوجي الكهربائي المباشر لإعادة تشكيل القلب المرتبط بالعمر على المستوى الخلوي. وتعد هذه الدقة ضرورية لتحديد الآليات الأيونية المحددة التي تكمن وراء خلل وظائف القلب المرتبط بالعمر، والتي لا يمكن تمييزها باستخدام تحضيرات العضو أو القلب الكامل وحده. وتوفر دراسة الخلايا العضلية القلبية الأصلية رؤية مباشرة حول كيفية تأثير الشيخوخة على الخصائص الفيزيولوجية الكهربائية الأساسية، بما في ذلك التيارات الأيونية وخصائص جهد الفعل.
تعد عدة خطوات في البروتوكول الحالي حاسمة للحصول على خلايا عضلة قلبية عالية الجودة ومناسبة لتثبيت الرقعة (patch-clamp) من N. furzeri. أولاً، يختلف نشاط الإنزيم بين الدفعات، لذا يجب ضبط تركيزات الكولاجيناز والتربسين لكل عملية تحضير. يؤدي الهضم المفرط إلى تلف الغشاء وفقدان وظيفة القنوات الأيونية، بينما ينتج عن الهضم الناقص عدد قليل من الخلايا ويمنع التلامس المستقر بين الماصة والغشاء. تحتفظ الخلايا المعزولة بمورفولوجيا متطاولة وعصوية ذات ساركوما سالس ملساء وسليمة، مما يشير إلى الحفاظ على السلامة الخلوية أثناء العزل؛ وفي بعض الخلايا، يمكن تمييز تخطيط ساركوميري باهت تحت المجهر الضوئي. هذا الحفاظ أمر بالغ الأهمية للحصول على بيانات فيزيولوجيا كهربائية موثوقة، حيث تظهر الخلايا التالفة غالباً تغيراً في وظيفة القنوات الأيونية وخصائص غشائية متضررة. ثانياً، يمثل الحجم الصغير لقلب N. furzeri تحدياً تقنياً يتطلب تحسيناً دقيقاً للعزل الإنزيمي وتشريحاً يدوياً دقيقاً، كما أن العائد الخلوي لكل قلب أقل منه في تحضيرات الثدييات. علاوة على ذلك، يعد التروية غير المتسقة أو التسرب من القلب الموصل بالقسطرة من أكثر التحديات شيوعاً التي قد تحدث أثناء الإجراء. تدرب على عملية التوصيل بالقسطرة في عدة قلوب لتطوير زاوية وعمق نهج متسقين. تأكد من خلو طرف الإبرة من فقاعات الهواء ومن ربط البصلة (bulbus) بإحكام دون قطع الأنسجة. أيضاً، قبل البدء في التسجيل، تأكد من أن الخلايا عصوية الشكل، ذات غشاء أملس وسليم (قد يكون التخطيط الباهت مرئياً في بعض الخلايا). يجب استبعاد الخلايا المستديرة أو الحبيبية. تحقق من أن جميع المحاليل محضرّة حديثاً ومعدلة القيمة الهيدروجينية (pH) بشكل صحيح. تأكد من أن مقاومة الماصة تقع في النطاق الموصى به (2.0–3.0 MΩ). أثناء التسجيل، تحقق من معلمات المضخم الموضحة أعلاه؛ بحيث لا تتجاوز مقاومة الوصول بعد التعويض 10–12 MΩ؛ ويكون جهد الغشاء وقت الراحة أقل سالبية من −70 mV في وضع تثبيت التيار (current-clamp mode)، وتكون الخلية قد شكلت ختم جيجا (gigaseal) مستقراً.
ومع ذلك، فإن البروتوكول ينتج بشكل موثوق خلايا عالية الجودة مناسبة لتسجيلات تثبيت الرقعة (patch clamp) وتطبيقات أخرى محتملة، مما يجعل N. furzeri نموذجاً عملياً للشيخوخة القلبية الخلوية. حيث توفر N. furzeri مزايا واضحة مقارنة بالنماذج الثديية التقليدية لدراسات الشيخوخة القلبية؛ فباعتبارها أقصر الفقاريات عمراً والتي يمكن تربيتها في الأسر، فإنها تسمح بإجراء دراسات طولية على الشيخوخة القلبية ضمن أطر زمنية عملية، مقارنة بنماذج الفئران التي تتطلب 18–24 شهراً للوصول إلى أعمار بيولوجية مماثلة15. ورغم قصر عمرها، فإنها تظهر سمات رئيسية لشيخوخة القلب في الفقاريات، بما في ذلك إعادة التشكل الكهروفيزيولوجي، والحفاظ على مدة جهد الفعل مع انخفاض سرعة الصعود، وتثبيط التيارات الأيونية الهامة6.
مقارنة مع طرق عزل الخلايا العضلية القلبية الحالية.
يعد العزل الإنزيمي للخلايا العضلية القلبية البطينية الحية شرطاً مسبقاً راسخاً لإجراء الفيزيولوجيا الكهربائية أحادية الخلية في مجموعة واسعة من الأنواع. وفي الثدييات، تعتمد الطريقة المعيارية الذهبية على تروية أبهرية تراجعية للقلب السليم باستخدام محلول منظم خالٍ من الكالسيوم، يليه محلول يحتوي على إنزيمات، عادةً ما تكون الكولاجيناز والبروتياز، تحت ضغط ودرجة حرارة محكومين. توفر هذه الاستراتيجية توصيلاً موحداً للإنزيمات عبر الأوعية التاجية، وتصريفاً فعالاً للدم، وتفكيكاً رفيقاً نسبياً لعضلة القلب، مما ينتج أعداداً كبيرة من الخلايا العضلية عصوية الشكل المناسبة لتسجيلات تثبيت الرقعة عالية الدقة16,17.
ومع ذلك، فإن التنظيم التشريحي للقلب في الأسماك العظمية وغياب الجهاز الشرياني التاجي المماثل لما هو موجود في الثدييات يستلزمان إجراء تعديلات مهمة. وفي سمكة الزرد، وهي واحدة من أكثر نماذج الأسماك الصغيرة استخداماً في أبحاث القلب والأوعية الدموية، يعتمد العزل الناجح للخلايا العضلية القلبية البطينية على هضم القلب السليم في محلول إنزيمي لفترة زمنية طويلة نسبياً8,9. وفي هذه البروتوكولات، يُنقل القلب المستأصل مباشرة إلى قطرة أو حجم صغير من المحلول الإنزيمي، حيث يتم تحضينه في درجة حرارة الغرفة أو في درجة حرارة مناسبة للنوع، يليه السحق الميكانيكي لتحرير الخلايا الفردية. وقد ثبت أن هذا النهج ينتج خلايا عضلية قلبية مخططة حيوية تدعم تسجيلات التيارات الأيونية الرئيسية11.
على الرغم من فائدتها، إلا أن استراتيجية الهضم بالدفعات تعاني من عدة قيود عند تطبيقها على القلوب الصغيرة جداً أو الهشة بشكل خاص. أولاً، يكون التعرض الإنزيمي أقل تحكماً: حيث تتعرض الطبقات الخارجية للبطين لتركيز إنزيمي فعال أعلى ولفترة زمنية أطول مقارنة بالطبقات الداخلية، مما قد يؤدي إلى هضم غير متجانس ومزيج من خلايا ناقصة أو زائدة الهضم. ثانياً، يزيد الغمر المطول في المحلول الإنزيمي من خطر الهضم المفرط، خاصة عندما تختلف نشاطات دفعات الإنزيمات أو عندما يكون القلب صغيراً بشكل استثنائي. ثالثاً، يعتمد غسل الدم بشكل أساسي على الانتشار السلبي والشطف اليدوي اللطيف، وهو ما قد لا يكون كافياً لتنظيف المساحات اللمعية الضيقة في بطين الأسماك العظمية الصغير تماماً.
لقد حافظنا على المبادئ العامة للمعالجة الخالية من الكالسيوم، والهضم الإنزيمي، والترقيق اللطيف. ومع ذلك، عدّلت الدراسة طريقة توصيل المحاليل من خلال تثبيت قنية في المصب artery bulbus وتروية تجويف البطين مباشرة. يتيح هذا النهج للباحث غسل الدم من المساحات البطينية قبل عملية الهضم، والتبديل بين المحاليل دون الحاجة إلى نقل القلب، وإنهاء المعالجة الإنزيمية عندما يبدأ جدار البطين في الارتخاء. وتعد هذه التعديلات مهمة بشكل خاص لقلب N. furzeri الصغير والحساس، حيث قد يؤدي الغمر المطول في المحلول الإنزيمي إلى هضم مفرط وانخفاض جودة الخلايا.
التطبيقات المستقبلية
تفتح طريقة العزل الحالية عدة آفاق للأبحاث المستقبلية. أولاً، فهي تتيح التوصيف المنهجي للتغيرات المعتمدة على العمر في مورفولوجيا جهد الفعل وكثافة التيار الأيوني وحركيته واعتماده على الجهد في خلايا عضلة القلب لسمكة N. furzeri، مما يكمل الأوصاف الجزيئية والنسيجية الحديثة لشيخوخة القلب في هذا النوع2,3,4,5. ثانياً، يمكن دمج هذا البروتوكول مع الأدوات الدوائية لاختبار كيفية تأثير التدخلات التي تعدل مدى الحياة أو مدى الصحة على الفيزيولوجيا الكهربائية للقلب على مستوى الخلية الواحدة. ثالثاً، يمكن استخدام خلايا عضلة القلب المعزولة من N. furzeri في تطبيقات تتجاوز تسجيلات تثبيت الرقعة (patch-clamp)، بما في ذلك التحليلات الجزيئية (qPCR و RNA-seq والبروتوميات) للتغيرات المرتبطة بالعمر في تعبير القنوات الأيونية والتعديلات ما بعد الترجمة، والكيمياء النسيجية المناعية، والتصوير عالي الدقة لتنظيم الساركومير. وأخيراً، يمكن تكييف الإطار المنهجي الموصوف هنا مع نماذج أخرى من الأسماك العظمية الصغيرة ذات الحجم والتشريح القلبي المماثل، مما يوسع فائدة N. furzeri كنموذج انتقالي لأبحاث شيخوخة القلب.
الإفصاحات
يعلن المؤلفون أنه ليس لديهم أي تضارب في المصالح المالية.
شكر وتقدير
تم دعم هذا العمل من قبل مؤسسة العلوم الروسية (منحة رقم 22-14-00075). ويُعرب المؤلفون عن امتنانهم لـ Andrei Nikiforov لمساعدته في تربية ورعاية مجموعة Nothobranchius furzeri المستخدمة في هذه الدراسة.
المواد
| الاسم | الشركة | رقم فهرسي | التعليقات |
|---|---|---|---|
| حقنة أنسولين سعة 1 مل | الهدف الطبي | 939863 | |
| محاقن سعة 10 مل | شركة Changzhou Jinlong Medical Plastic Appliancy Co | - | |
| طبق بتري سعة 100 ملم | SARSTEDT | 83.3902 | |
| 100 μL ماصة دقيقة | Thermo Scientific | 4640040 | |
| طبق زراعة أنسجة مقاس 35 مم | SPL LIFE SCIENCES | 11035 | |
| صمام إيقاف تدفق ثلاثي الاتجاهات | شركة iLife Medical Devices Pvt. Ltd | 902.07.10 | |
| 500 μL أنبوب | Eppendorf | EP0030124537-500EA | |
| 5-200 μL رأس | Deltalab | 200009 | |
| مضخم | الأجهزة الجزيئية | Axopatch 200B | |
| بلو تاك (Blu Tack) | BOSTIK | 202401906 | |
| أنابيب شعرية من زجاج البوروسيليكات | Sutter Instrument | B150-110-10 | |
| ألبومين المصل البقري | Dia-M | 9048-46-8 ألبومين المصل البقري (BSA).0100 | |
| CaCl2*2H20 | Sigma-Aldrich | C5080 | |
| كرومانول 293B | Sigma-Aldrich | C2615 | |
| كولاجينيز 1A من النوع الأول | Sigma-Aldrich | C9891 | |
| كلوريد السيزيوم | Acros Organics | 422855000 | |
| CsOH | Sigma-Aldrich | 232068 | |
| إبرة توزيع (32G) | بيستيان | 744370739503 | |
| E4031 | MedChemExpress | HY-15551 | |
| إي جي تي إيه (EGTA) | Sigma-Aldrich | E-4378 | |
| جلوكوز | هيليكون | Solarbio G8150-500G | |
| هيبس (HEPES) | Sigma-Aldrich | H3375 | |
| مجهر مقلوب | Nikon | - | Eclipse Ti-S |
| كلوريد البوتاسيوم | شيمد | 00000000089 | |
| KH2PO4 | هيليكون | SRL-90654-500G | |
| KOH | هيليكون | SRL-38630-1KG | |
| MgATP | ماكلين | A922363 | |
| MgCl2*6H2O | هيليكون | Solarbio M8161 | |
| MgSO4*7H2O | هيليكون | SRL-74440-500G | |
| المتحكم الدقيق | البيانات الواقعية (RWD) | MM-500 | |
| ملاقط جراحة العيون المجهرية | سيلتا (CILITA) | F-111T | |
| مقصات جراحة العيون المجهرية | CILITA | S-056S | |
| Na2GTP | Sigma-Aldrich | 51120 | |
| NaCl | هيليكون | H-1418-1.0 | |
| NaOH | هيليكون | SRL-13913-500G | |
| نيفيديبين | Sigma-Aldrich | N7634 | |
| نظام التروية | التقنيات الحيوية | Bio_4_p | |
| جهاز سحب الماصات | مجموعة Narishige | PC-10 | |
| أنابيب سيليكون (القطر = 8 مم) | MEDSIL | TY 9398-004-18037666-94 | |
| حامل | مختبر NV | 00000034085 | |
| مجهر ستيريو (مجهر تشريحي) | Labkompleks LCC | 10557 | |
| تورين | Acros Organics | 166545000 | |
| كلوريد رباعي إيثيل الأمونيوم (TEA) | Merck | 822148 | |
| تترودوتوكسين | Tocris Bioscience | 1078 | |
| تريبسين | Sigma-Aldrich | T0303 | |
| برنامج WinWCP | جامعة ستراثكلايد | - | V5.7.5 |
المراجع
- Nakou E et al. Healthy aging and myocardium: a complicated process with various effects in cardiac structure and physiology. Int J Cardiol. 2016;209:167-175.
- Ma X et al. Nothobranchius furzeri: a vertebrate model for studying cardiac aging and cellular senescence. NPJ Aging. 2025;11(1):63.
- Valdesalici S, Cellerino A. Extremely short lifespan in the annual fish Nothobranchius furzeri. Proc R Soc Lond B Biol Sci. 2003;270(Suppl 2):S189-191.
- Platzer M, Englert C. Nothobranchius furzeri: a model for aging research and more. Trends Genet. 2016;32(9):543-552.
- Otsuka T, Matsui H. The African turquoise killifish (Nothobranchius furzeri): a model of age-related diseases and declining regenerative capability across multiple organs. Mech Ageing Dev. 2025;226:112087.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Abramochkin DV. Aging-associated remodeling of ionic currents in ventricular myocytes of seasonal fish Nothobranchius furzeri. Comp Biochem Physiol A Mol Integr Physiol. 2026;317:112013.
- Sander V et al. Isolation and in vitro culture of primary cardiomyocytes from adult zebrafish hearts. Nat Protoc. 2013;8(4):800-809.
- Singareddy SS, McClenaghan C, Roessler HI, Tryon R, Nichols CG. Isolation of cardiac and vascular smooth muscle cells from adult, juvenile, larval and embryonic zebrafish for electrophysiological studies. J Vis Exp. 2022;(180):63225.
- Vornanen M. Sarcolemmal Ca influx through L-type Ca channels in ventricular myocytes of a teleost fish. Am J Physiol Regul Integr Comp Physiol. 1997;272(5):R1432-R1440.
- Polačik M, Blažek R, Reichard M. Laboratory breeding of the short-lived annual killifish Nothobranchius furzeri. Nat Protoc. 2016;11(8):1396-1413.
- Dzhumaniiazova I, Vornanen M, Pustovit OB, Voronkov YI, Abramochkin DV. Effects of tetrodotoxin and ranolazine on the late INa of zebrafish ventricular myocytes. J Evol Biochem Phys. 2022;58(Suppl 1):S22-S30.
- Brette F et al. Characterization of isolated ventricular myocytes from adult zebrafish (Danio rerio). Biochem Biophys Res Commun. 2008;374(1):143-146.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Pustovit OB, Abramochkin DV. Reduction of fast sodium current in the myocardium of fish (N. furzeri) during aging. Bull Exp Biol Med. 2026;181(1):109-116.
- Joukar S. A comparative review on heart ion channels, action potentials and electrocardiogram in rodents and human: extrapolation of experimental insights to clinic. Lab Anim Res. 2021;37(1):25.
- Holtze S et al. Alternative animal models of aging research. Front Mol Biosci. 2021;8.
- Wolska BM, Solaro RJ. Method for isolation of adult mouse cardiac myocytes for studies of contraction and microfluorimetry. Am J Physiol Heart Circ Physiol. 1996;271:H1250-H1255.
- Louch WE, Sheehan KA, Wolska BM. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 2011;51(3):288-298.
إعادة الطباعة والأذونات
تم نشر هذه المقالة
الفيديو قريباً