Certaines perturbations génétiques ou l’exposition à des toxines peuvent perturber les processus de développement normaux conduisant à la mort de types de cellules spécifiques. L’analyse de la caspase 3 activée par immunofluorescence dans l’ensemble des embryons de poisson-zèbre révèle une localisation spécifique au stade et au tissu des cellules subissant spécifiquement l’apoptose.
Article de méthode
Analyse de l'apoptose dans embryons de poissons zèbres par Whole montage immunofluorescence pour détecter caspase 3
Dans cet article
Résumé
Résumé
L’immunofluorescence à monture entière pour détecter la caspase 3 activée (test Casp3) est utile pour identifier les cellules subissant une apoptose intrinsèque ou extrinsèque chez les embryons de poisson-zèbre. L’analyse de l’ensemble du montage fournit des informations spatiales en ce qui concerne la spécificité tissulaire des cellules apoptoses, bien que le sectionnement et/ou le comarquage soient finalement nécessaires pour identifier les types de cellules exacts subissant l’apoptose. Le test Casp3 est optimisé pour l’analyse d’embryons fixes entre le stade 4 cellules et 32 heures après la fécondation et est utile pour un certain nombre d’applications, notamment l’analyse des mutants et des morphants du poisson-zèbre, la surexpression des ARNm mutants et de type sauvage et l’exposition aux produits chimiques. Par rapport à la coloration à l’orange acridine, qui permet d’identifier les cellules apoptotiques dans les embryons vivants en quelques heures, les tests Casp3 et TUNEL prennent beaucoup plus de temps (2 à 4 jours). Cependant, en raison de la nature dynamique de la formation et de la clairance des cellules apoptotiques, l’analyse des embryons fixes garantit une comparaison précise des cellules apoptotiques sur plusieurs échantillons à des moments spécifiques. Nous avons également constaté que le test Casp3 est supérieur à l’analyse des cellules apoptotiques par le test TUNEL à montage entier en ce qui concerne le coût et la fiabilité. Dans l’ensemble, le test Casp3 représente un test robuste et hautement reproductible dans lequel analyser les cellules apoptotiques dans les embryons précoces de poisson-zèbre.
Introduction
Nous décrivons ici comment effectuer l’immunofluorescence complète chez des embryons précoces de poisson-zèbre pour détecter des cellules avec Caspase 3 activée (ci-après appelé le test Casp3). L’objectif global de cette méthode est d’identifier l’abondance relative et l’emplacement des cellules apoptotiques chez le poisson-zèbre du stade 4 cellules jusqu’à 32 heures après la fécondation (hpf).
Les voies apoptotiques intrinsèques (médiées par les mitochondries) et extrinsèques (médiées par les récepteurs de mort) médient la mort cellulaire par l’activation de la cascade de caspases1-2. Les caspases initiatrices existent normalement sous forme de monomères dans la cellule, et une fois recrutées sur des plates-formes spécifiques à la voie en réponse à un signal pro-apoptotique, elles deviennent des dimères activés. Les caspases initiatrices activées (Caspase 9 ; voie intrinsèque, et Caspase 8 ; voie extrinsèque) ciblent ensuite les caspases effectrices prédimérisées et inactives (Caspase 3, 6, 7) pour que le clivage forme des hétérotétramères actifs. Les caspases effectrices actives clivent ensuite les cibles cellulaires avec des résidus tétrapeptides spécifiques pour initier la destruction protéolytique spécifique qui culmine dans les caractéristiques ultrastructurales de l’apoptose, telles que la condensation de la chromatine et le gonflement de la membrane, et les signaux de surface cellulaire qui médient l’emballage de la cellule pour l’engloutissement par les phagocytes de manière immunitaire silencieuse. Dans les cellules de mammifères, on pense que les caspases effectrices actives effectuent la majorité des événements de clivage cellulaire qui médient l’apoptose par les voies intrinsèques et extrinsèques1-2. Le protocole décrit dans le présent document utilise un anticorps qui se lie spécifiquement à la forme hétérotétramérique clivée de la caspase 3, mais pas au dimère inactif de la caspase 3.
L’un des avantages du test Casp3 est la capacité de visualiser la distribution spatiale des cellules apoptotiques dans le contexte de l’embryon entier. Par conséquent, les tissus d’intérêt peuvent être examinés pour détecter la présence de cellules apoptotiques, et s’il existe des anticorps ou des souches transgéniques fluorescentes qui marquent des types de cellules spécifiques, il est alors possible de déterminer l’identité exacte des cellules subissant l’apoptose grâce à des expériences de co-marquage. Plusieurs groupes ont utilisé avec succès la caspase 3 activée comme marqueur de l’apoptose chez les embryons de poisson-zèbre (par exemple 3-7). D’autres techniques de montage entier pour identifier les cellules apoptotiques dans les embryons de poisson-zèbre comprennent le test TUNEL8 et la coloration à l’orange acridine (AO)9. Nous avons utilisé les trois méthodes pour identifier les cellules apoptotiques dans les embryons de poisson-zèbre4,6,10.
La coloration TUNEL (Terminal deoxynucleotidyl transferase dUTP nick end marking) tire parti de l’enzyme Terminal deoxynucleotidyl Transferase (TdT) qui est utilisée pour ajouter des nucléotides aux extrémités hydroxyles 3' de l’ADN lors de la recombinaison VDJ dans les lymphocytes11. TdT ajoute de la biotine dUTP aux groupes hydroxyles 3' libres dans l’ADN, qui sont abondants principalement dans les cellules apoptotiques. Les tissus sont ensuite exposés à l’avidine-peroxydase, et les cellules apoptotiques sont colorées lors de l’ajout du substrat 3-amino-9-éthylcarbazole. Le test TUNEL a été utilisé pour effectuer une analyse approfondie des cellules apoptotiques au cours du développement embryonnaire dans des tissus de poisson-zèbre de type sauvage12. Semblable au test Casp3, le test TUNEL n’est effectué que sur des embryons fixes. Nous avons constaté que le test Casp3 est plus cohérent et moins coûteux que le test TUNEL.
AO a d’abord été décrite comme un mécanisme permettant d’identifier spécifiquement les cellules apoptotiques chez la drosophile13. L’AO colore à la fois le cytoplasme et le noyau des cellules apoptotiques, mais pas nécrotiques. L’AO est bien connu pour se lier aux acides nucléiques14, ce qui expliquerait la coloration nucléaire. Cependant, l’AO ne colore pas la chromatine des cellules vivantes ; Il semble plutôt que des changements spécifiques se produisant au cours de l’apoptose permettent l’intercalation et la coloration des noyaux apoptotiques condensés15. La coloration AO présente l’avantage d’une analyse apoptotique rapide des embryons vivants. Cependant, la documentation des échantillons doit être effectuée rapidement en raison de la nature dynamique de la formation et de la clairance des cellules apoptotiques. D’autre part, la fixation simultanée de tous les échantillons fournit un instantané de l’apoptose à un moment donné sur tous les échantillons et n’est pas soumise à cette variable temporelle. Ainsi, étant donné que l’analyse des cellules apoptotiques par coloration AO n’est pas compatible avec des embryons fixes, le test Casp3 est préférable pour les expériences dans lesquelles une documentation photographique et/ou une quantification sont nécessaires sur plusieurs échantillons.
Protocole
1. Préparation des solutions
- Préparez 500 ml de 1x PBST (1x PBS, 0,1 % Tween-20) et filtrez la stérilisation. 1x PBST peut être conservé à température ambiante (RT) indéfiniment tant qu’il n’y a aucun signe de croissance bactérienne.
- ATTENTION : Préparez 50 ml de paraformaldéhyde (PFA) à 4 % dans une hotte chimique en dissolvant le PFA en poudre dans 1x PBS à 60 °C pendant 1 heure et en le recouvrant d’une feuille d’aluminium pour le protéger de la lumière. Se conserve à 4 °C pendant 1 mois, ou à -20 °C pendant 2 ans.
- Préparez 500 ml de 1x PDT frais (1x PBST, 0,3 % Triton-X, 1 % DMSO). 1x PDT peut être conservé à 4 °C jusqu’à un mois.
- Préparez 50 ml de tampon bloquant (1 PBST, 10 % de sérum de veau fœtal inactivé par la chaleur, 2 % d’albumine sérique de bovin). Créez 10 ml d’aliquotes et conservez-les à -20 °C jusqu’à 1 an. Une fois décongelé, le tampon de blocage peut être stocké à 4 °C jusqu’à 48 heures.
- Préparez 100 ml de méthylcellulose à 4 % en chauffant 30 ml d’eau à 80 °C. Ajoutez 4 g de méthylcellulose à l’eau chaude et mélangez à l’aide d’un barreur sur une plaque à mélanger à température ambiante. Un mélange complet prend généralement entre 4 heures et toute la nuit. Ajouter le reste de l’eau (non chauffée) et mélanger à 4 °C pendant 1 heure. Magasin chez RT.
- Si vous utilisez des embryons entre le stade du bourgeon caudalin et 32 hpf, préparer 50 ml de pronase à 10 mg/ml et les conserver jusqu’à 1 semaine à 4 °C. Sinon, les conserver dans des aliquotes de 10 ml à -20 °C jusqu’à 1 an.
- Placez 50 ml de méthanol à 100 % à -20 °C.
- Préparez 60x eau d’œuf en dissolvant 280 g de sel de mer de mer instantané dans 2 L d’eau distillée (comme dans Westerfield16). Préparez 1x eau d’œuf en diluant le bouillon 60x dans de l’eau déminéralisée.
2. Préparation des embryons
- Prélevez des embryons de poisson-zèbre dans une boîte de Pétri dans 1x eau d’œuf entre le stade 4 cellules et 32 hpf.
- Pour les embryons entre les stades 4 cellules et tailbud, passez à l’étape 2.2.
- Pour les embryons entre le stade de bourgeon caudalin et 32 hpf, enlever les chorions en ajoutant 100 μl de 10 mg/ml de pronase aux embryons dans 10 ml de 1x d’eau d’œuf.
- Remarque : L’activité de la pronase peut varier d’un lot à l’autre. Ainsi, la concentration finale de pronase doit être optimisée pour la déchorionation lorsque de nouveaux lots sont obtenus.
- Laisser incuber à température ambiante pendant 30 min.
- Versez l’eau d’œuf / solution de pronase dans les déchets et rajoutez lentement 1x eau d’œuf fraîche.
- Rincez 2 fois en versant l’eau d’œuf existante (et les chorions flottants) et ajoutez doucement de l’eau d’œuf neuve.
- Remarque : La plupart des chorions doivent être retirés à ce stade. À l’aide d’une pipette de transfert, aspirez doucement les embryons de haut en bas jusqu’à ce que les chorions restants soient retirés.
- Transférez jusqu’à 40 embryons dans un tube de 1,5 ml. Rincer 2 fois avec 1 ml de 1x PBST.
- Retirer le PBST en laissant le liquide juste au-dessus des embryons (environ 100 μl de volume doit rester dans le tube). Ajouter 1 ml de PFA à 4 %. Posez les tubes sur le côté (de manière à ce que les embryons s’étalent sur toute la longueur du tube) dans un récipient de taille appropriée pour faciliter le transport (par exemple, une boîte de Pétri ou le dessus d’une boîte à pipettes) et placez-les sur une bascule douce à 4 °C pendant la nuit ou jusqu’à une semaine.
- Pour les embryons entre les stades 4 cellules et du bourgeon caudal, déchorionnez manuellement les embryons fixés avec des pinces.
3. Procédure d’immunofluorescence
- Placez les tubes dans un support de tubes de manière à ce que tous les embryons coulent au fond du tube. Retirer le PFA (dans le récipient à déchets approprié) en laissant le liquide juste au-dessus du niveau des embryons. Après la fixation (étape 2.3), les embryons ne doivent jamais être exposés à l’air afin d’éviter la coloration de fond des anticorps.
- Ajouter 1 ml de méthanol 100 % glacé (pour perméabiliser) goutte à goutte. Les embryons sont maintenant fragiles après la fixation, et des précautions supplémentaires doivent être prises pour éviter qu’ils ne tombent dans le tube lors de tous les retraits/ajouts ultérieurs de liquides. Posez les tubes sur le côté et placez-les à -20 °C pendant 2 heures. Alternativement, les embryons peuvent être laissés à -20 °C jusqu’à 24 heures.
- Placez les tubes dans une grille pour recueillir les embryons au fond du tube. Retirez le méthanol en laissant le liquide juste au-dessus du niveau des embryons.
- Ajouter délicatement 1 ml 1x PDT. Retirez le PDT et ajoutez 1 ml de 1x PDT frais. Posez les tubes sur le côté et balancez-vous doucement à RT pendant 30 minutes. Retirez le PDT et répétez 30 minutes de lavage avec du PDT frais.
- Retirez la PDT jusqu’à ce que le liquide soit juste au-dessus du niveau des embryons et ajoutez un tampon de blocage de 500 μl.
- Disposez les embryons sur le côté dans un récipient de transport et assurez-vous que les embryons ne voyagent pas plus de 2/3 sur la longueur du tube. Sinon, les embryons se coincent dans le couvercle du tube et à l’extérieur du liquide.
- Placez soigneusement le conteneur de transport avec les tubes sur une bascule très douce à RT pendant 1 heure.
- Placez les tubes à la verticale dans un support à tubes et ouvrez tous les tubes pour vérifier s’il n’y a pas d’embryons collés sur le couvercle. Pour tous les tubes avec des embryons sur le couvercle, fermez le haut et secouez doucement le tube à la main pour ramener tous les embryons dans le liquide.
- Ajouter 1 μl d’anticorps anti-caspase 3 de lapin (dilution 1:500).
- Si vous effectuez une expérience de co-marquage, il suffit d’ajouter la dilution appropriée du deuxième anticorps non dérivé du lapin en plus de l’anticorps anti-activé Caspase 3.
- Posez soigneusement les embryons sur le côté et balancez-les doucement à température ambiante pendant 2 heures. Alternativement, les embryons peuvent être incubés à 4 °C pendant la nuit.
- Placez les tubes dans un rack de tubes. Retirer la solution de bloc/anticorps. Ajouter 1 ml de 1x PDT. Assurez-vous de retourner le tube à la main pour recueillir les embryons collés sur le couvercle du tube. Ensuite, ouvrez tous les tubes pour vous assurer que tous les embryons ont été retirés du couvercle.
- Répétez l’étape 3.4.
- Répétez les étapes 3.5 à 3.10, mais remplacez l’anticorps anti-activé Caspase 3 par la dilution appropriée d’un anticorps conjugué au fluorophore anti-lapin qui absorbe la lumière bleue et émet de la lumière verte. Cependant, tout anticorps conjugué à un fluorophore avec des spectres d’absorption/émission préférables par l’utilisateur peut être utilisé ici. Après l’ajout de l’anticorps secondaire, il est important de garder les embryons dans l’obscurité pour le reste du test. Couvrez le récipient de transport avec du papier d’aluminium pendant les étapes d’incubation, mais ne vous inquiétez pas de l’exposition à la lumière lors du changement de tampons.
- Si vous effectuez une expérience de co-marquage, il suffit d’ajouter la dilution appropriée d’un anticorps secondaire complémentaire conjugué au fluorophore à cette étape.
- Remarque : Si l’utilisateur souhaite co-marquer la caspase 3 active avec des cellules exprimant la GFP, l’anticorps anti-active Caspase 3 de lapin doit être suivi ici d’un anticorps secondaire anti-lapin fluorescent non vert, et l’anticorps anti-GFP doit être suivi d’un anticorps secondaire non lapin fluorescent vert. Cela éliminera la confusion si une certaine fluorescence Gfp reste visible après la fixation des embryons.
4. Analyse des cellules apoptotiques par microscopie à fluorescence
- Analysez les embryons en 1x PDT dans une petite boîte de Pétri ou une plaque de verre sous un microscope fluorescent à l’aide du filtre lumineux approprié. Si les témoins positifs ont une fluorescence brillante avec un bruit de fond minimal, passez à l’étape 4.2. (Si ce n’est pas le cas, consultez la section de dépannage dans la discussion, et répétez le protocole avec de nouveaux embryons.) Les embryons peuvent être conservés à 4 °C dans 1x PDT jusqu’à 48 heures.
- Versez 4 % de méthylcellulose dans une boîte de Pétri de 3,5 cm, juste assez pour couvrir le fond du plat. Alternativement, une plaque de verre ou une lame de dépression peut être utilisée avec une grosse goutte de méthylcellulose dans la dépression. Aspirez soigneusement les embryons du fond du tube dans une pipette de transfert propre et transférez-les sur la plaque de Pétri pour la visualisation.
- Orientez un embryon d’intérêt pour la documentation à l’aide d’une sonde inclinée. Il y aura probablement une certaine variabilité entre les embryons d’un même échantillon, il est donc important de prendre des images qui représentent l’intensité et le motif de fluorescence observés dans la majorité des embryons de cet échantillon. La documentation doit être effectuée dans les 48 heures suivant la fin du test afin d’éviter l’accumulation de fluorescence de fond non spécifique. La méthylcellulose résiduelle à 4 % n’interférera pas avec les réactions PCR ultérieures nécessaires au génotypage des embryons.
- Remarque : Pour faciliter l’immobilisation d’un embryon à un certain angle, il est utile de pousser doucement l’embryon au fond de la boîte de sorte que le jaune ou une autre partie de l’embryon (selon la vue souhaitée) repose sur le fond de la boîte. Ensuite, utilisez la sonde pour déplacer soit l’embryon, soit la méthylcellulose qui l’entoure immédiatement (tout en visualisant simultanément au microscope) afin d’obtenir l’angle souhaité pour la documentation.
Résultats
Le test Casp3 fournit des preuves claires de cellules apoptotiques à partir du stade à 4 cellules jusqu'à 32 hpf. Figure 2A montre qu'une injection d'embryons avec des concentrations élevées d'ARNm codant pour des protéines pro-apoptotiques de type BH3-only puissantes, telles que Bim ou Noxa, induit rapidement une forme active de la caspase-3 dès le stade à 4 cellules. La mort embryonnaire survient ensuite dans l'heure qui suit.4. Remarquez que l'intensité de la fluorescence est modérée, mais que les résultats sont concluants. À des stades plus avancés, l'intensité de la fluorescence est plus forte. Par exemple, Figure 2B montre des cellules actives positives pour la caspase-3 active dans des embryons au stade sphère ayant été injectés avec des niveaux modérément toxiques4 d'ARNm codant pour le facteur pro-apoptotique seulement-bh3 gène puma. ARN messager codant pour l'anti-apoptotique bcl-2 le gène a été copinjecté pour prouver que l'injection de puma L'ARNm induit l'apoptose par la voie intrinsèque, médiée par les mitochondries.
L'apoptose induite par les RI chez le poisson zèbre nécessite la transcription médiée par p53 de gènes de la famille BH3-only tels que puma5-6. Le retard de l'apoptose induite par les IR dans Figure 3 est conforme à la nécessité d'une transcription médiée par p53.
Le protocole Casp3 doit produire un rapport signal-sur-bruit robuste. Figure 4 compare le résultat optimal du test Casp3 à deux résultats suboptimaux fréquents qui surviennent lorsque des étapes critiques sont compromises (voir Discussion) : un faible rapport signal-sur-bruit dû à la fluorescence de fond dans les tissus animaux et à la fluorescence du vitellus qui masque le signal d'intérêt.
Des expériences de double marquage utilisant des lignées transgéniques exprimant la GFP permettent d'approcher les tissus subissant un processus d'apoptose (Figure 5).
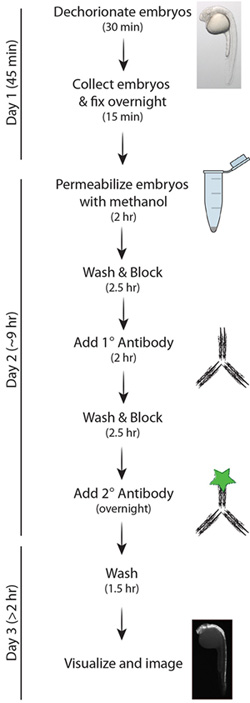
Figure 1. Schéma simplifié du protocole Casp3.

Figure 2. (A) Analyse de l'apoptose dans des embryons au stade 4 cellules. Les embryons ont été injectés au stade une cellule avec 50 pg d'ARNm codant pour egfp (témoin) ou le pro-apoptotique seulement bh3 gènes bim et noxa. Au stade 4 cellules (environ une heure après l'injection, hpi), les embryons ont été analysés par immunofluorescence afin de détecter la caspase 3 activée. Bim et noxa L'ARNm induit une apoptose rapide chez les embryons de poisson zèbre immédiatement après injection, ce qui, si les embryons sont laissés en développement, conduit à la mort à 2 hpi4. Une image en champ clair d'un embryon sauvage au stade 4 cellules est présentée à titre de comparaison. (B) Analyse de l'apoptose chez des embryons de poisson-zèbre au stade sphère. Les embryons ont été injectés au stade une cellule avec un ARNm codant soit pour 50 pg egfp (témoin), 5 pg puma plus 45 pg egfp (puma), ou 5 pg puma plus 45 pg de bcl-2 (bcl-2). À l'étape de gastrula (environ 4 hpi), les embryons ont été analysés par le test Casp3. Des vues latérales et du pôle animal sont présentées afin de visualiser les cellules apoptotiques. Récupération de l'apoptose induite par puma par bcl-2 indique que l'injection de puma L'ARNm induit l'apoptose spécifiquement par la voie intrinsèque, médiée par les mitochondries. Une image en champ clair d'un embryon au stade sphère de type sauvage est présentée à titre de comparaison.

Figure 3. Évolution temporelle de l'apoptose induite par un rayonnement ionisant (IR) entre 17 et 20 hpf. Des embryons de poisson zèbre ont été irradiés avec 8 Gy de rayonnement ionisant (IR) à 17 hpf puis analysés à 0, 1,5, 2 et 3 heures post-irradiation (hpIR) à l’aide du test Casp3. Les flèches observées à 20 hpf indiquent l’accumulation de cellules apoptotiques dans la moelle épinière à 3 hpIR. Une image en champ clair d’un embryon de 17 hpf est présentée à titre comparatif.
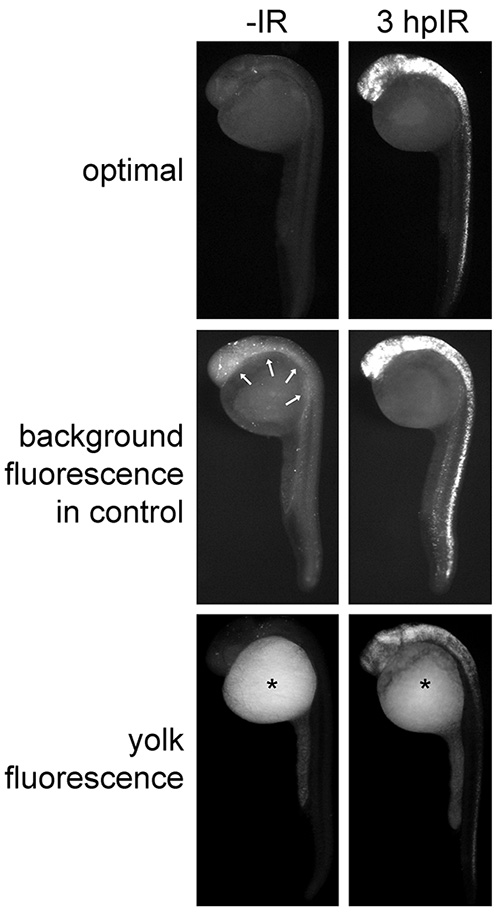
Figure 4. Résultats d'immunofluorescence Casp3 optimaux et suboptimaux sur des embryons de 27 hpf. Des embryons de poisson zèbre ont été irradiés (ou non) à 24 hpf avec 15 Gy et analysés par le test Casp3. Le groupe « optimal » montre des résultats idéaux dans lesquels les cellules apoptotiques présentent une forte fluorescence, tandis que les cellules non apoptotiques et le vitellus montrent une fluorescence de fond minimale. Les flèches dans le groupe « fluorescence de fond dans le témoin » indiquent une fluorescence de fond excessive dans les tissus embryonnaires témoins. Les astérisques dans le groupe « fluorescence du vitellus » montrent une fluorescence non spécifique excessive dans le vitellus.
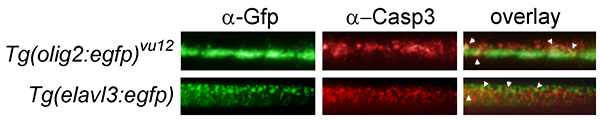
Figure 5. Des expériences de double marquage estiment la spécificité tissulaire de l'apoptose induite par les rayonnements ionisants. La lignée transgénique Tg(olig2:egfp)vu12 marque les motoneurones et les oligodendrocytes17, et la lignée Tg(elavl3:egfp) marque tous les neurones en cours de différenciation18. Chaque lignée transgénique a été irradiée à 15 Gy à 24 hpf puis analysée 3 heures plus tard à l’aide d’anticorps primaires anti-GFP de souris et anti-caspase 3 active de lapin, suivis respectivement d’anticorps secondaires fluorescents verts et rouges. Une vue agrandie de la moelle épinière (située en dorsalité par rapport à l’extrémité de l’extension du vitellus chez des embryons de 27 hpf, 3 h après irradiation) est présentée. Les cellules apoptotiques semblent partiellement localisées au sein des populations Tg(elavl3:egfp) et Tg(olig2:egfp)vu12 (voir les flèches sur le schéma de superposition), suggérant que les neurones et les oligodendrocytes sont sensibles à l’apoptose induite par les rayonnements ionisants.
Discussion
Le test Casp3 tel que présenté dans ce protocole est censé être simple et, s’il est effectué comme indiqué dans le présent document, devrait donner lieu à un rapport signal/bruit robuste. Les étapes critiques de ce protocole comprennent l’utilisation d’un tampon PDT 1x frais pour tous les lavages, une durée suffisante des étapes de lavage dans le tampon PDT après l’incubation des embryons dans l’anticorps primaire, une manipulation en douceur des embryons et un comptage méticuleux de tous les embryons dans les tubes ou les pipettes de transfert pendant toutes les étapes du protocole.
D’après notre expérience, les raisons les plus courantes de l’absence de signal sur les témoins positifs sont les suivantes : 1) 1x PBST est substitué à 1x PDT pendant les étapes de lavage, 2) 1x tampon PDT a plus d’un mois, 3) le mauvais anticorps secondaire a été utilisé, 4) les embryons sont plus vieux que 32 hpf et/ou 5) plus de 40 embryons ont été analysés dans un tube. Lorsque des résultats incohérents ou une variabilité se produisent dans les échantillons, c’est généralement parce que 1) on n’a pas pris soin de s’assurer que tous les embryons restaient dans le liquide à tout moment pendant la procédure, et/ou 2) les embryons n’ont pas été incubés sous un balancement suffisant. Des niveaux élevés de bruit de fond sont souvent visualisés sous la forme d’une brume fluorescente générale se formant dans tout le tissu animal de l’embryon (voir la figure 4, « fluorescence de fond »). Un mauvais rapport signal/bruit peut survenir lorsque 1) les embryons n’ont pas été lavés suffisamment longtemps après l’anticorps primaire, et/ou 2) les embryons ont été laissés dans du PFA ou du méthanol plus longtemps que la durée recommandée. Si les embryons ne restent pas intacts à la fin de l’essai : 1) les solutions n’ont pas été ajoutées goutte à goutte après la fixation avec le PFA, et/ou 2) la vitesse de la bascule pendant les étapes d’incubation a été réglée trop élevée.
La visualisation de l’ensemble du montage inhérente au test Casp3 est utile pour la localisation spatiale des cellules apoptotiques. Cependant, la spécificité tissulaire est approximative et dépendra probablement des techniques de comarquage (voir Figure 5) et/ou de la section de l’embryon pour déterminer l’identité exacte des cellules subissant l’apoptose. Dans le protocole décrit ici, le co-étiquetage est limité par l’exigence de l’anticorps spécifique dérivé du lapin utilisé dans notre test. Nous n’avons pas identifié d’anticorps anti-caspase 3 activée non dérivé de lapin disponible dans le commerce qui marque spécifiquement les cellules apoptotiques par immunofluorescence complète chez les embryons de poisson-zèbre. Ainsi, les anticorps spécifiques de type cellulaire qui sont élevés chez le lapin ne seront pas compatibles avec le test Casp3 pour les expériences de co-marquage. Une alternative consiste à effectuer un test TUNEL qui nécessite un anticorps dérivé de la souris pour marquer les cellules apoptotiques6. Cependant, nous avons constaté que le test TUNEL sur l’ensemble du montage effectué sur des embryons de poisson-zèbre est très sensible à un certain nombre de variables dans la réaction, y compris la concentration de l’enzyme TdT, la durée de l’incubation de l’embryon dans l’enzyme TdT et le nombre d’embryons présents par tube (nos observations non publiées). Ainsi, il est difficile de trouver un équilibre d’enzymes qui donne une interprétation cohérente des résultats. Par conséquent, une alternative préférable consiste à analyser les cellules apoptotiques dans des embryons de poisson-zèbre transgénique qui expriment un fluorophore (avec des anticorps robustes disponibles dans le commerce) comme la GFP dans un type de cellule spécifique. Ensuite, des expériences de co-marquage peuvent être réalisées à l’aide d’un anticorps primaire anti-Gfp de souris suivi d’un anticorps secondaire anti-souris fluorescent vert. Voir la figure 5 pour un exemple.
Bien que le protocole Casp3 permette une coloration robuste et fiable des cellules apoptotiques dans les embryons du stade 4 cellules jusqu’à 32 hpf, il a une application limitée au-delà de 32 hpf en raison de l’incapacité des anticorps à pénétrer la peau des embryons plus âgés. Des techniques supplémentaires de perméabilisation des embryons, y compris le traitement à la collagénase, à la trypsine, à l’acétone ou à l’éthanol, pourraient potentiellement être optimisées pour adapter ce test à l’analyse d’embryons plus âgés. La coloration à l’AO peut cependant être effectuée sur des poissons-zèbres vivants jusqu’à l’âge de 5 jours au moins9. Ainsi, le test AO contourne la restriction du stade embryonnaire et représente un test rapide pour analyser les cellules apoptotiques (1-2 heures). En revanche, le test Casp3 nécessite une fixation nocturne des embryons et prend de 2 à 4 jours. Les inconvénients du test AO incluent que la documentation photographique efficace des embryons peut être difficile avec plusieurs échantillons, car les embryons sont vivants et les cellules apoptotiques sont rapidement formées et éliminées. Cela peut être particulièrement problématique si les embryons doivent être montés pour obtenir une orientation spécifique pour la documentation. De plus, nous avons constaté que la coloration AO diminue après la fixation avec le PFA, elle n’est donc pas compatible avec les expériences de co-marquage impliquant l’immunofluorescence.
L’analyse quantitative de la caspase 3 activée peut être effectuée à l’aide de logiciels qui mesurent l’intensité de fluorescence des images documentées. Nous avons quantifié l’apoptose induite par l’IR dans le tissu neural, une méthode que nous avons décrite en détail ailleurs10. Selon l’expérience, l’analyse quantitative de la caspase activée 3 peut nécessiter une manipulation supplémentaire des embryons, telle qu’un montage à plat, afin d’obtenir une orientation correcte pour une analyse optimale des tissus. De plus, la linéarité de l’analyse dépendra de l’épaisseur du tissu analysé. Par exemple, nous avons analysé l’apoptose induite par l’IR dans le tissu neural en mesurant l’immunofluorescence de la caspase 3 active dans le tissu neural peu profond de la moelle épinière plutôt que dans le tissu dense en neurones du cerveau4,10.
D’après notre expérience, le test Casp3 est le test le plus robuste et le plus fiable disponible pour analyser l’apoptose chez les embryons de poisson-zèbre entre le stade 4 cellules et 32 hpf lorsque l’analyse nécessite suffisamment de temps pour la documentation. Lorsque des anticorps ou des lignées transgéniques appropriés sont disponibles pour identifier des cellules spécifiques, ce test se prête également très bien au comarquage pour identifier les types de cellules spécifiques subissant l’apoptose.
Déclarations de divulgation
Les auteurs n’ont rien à divulguer.
Remerciements
Le financement a été fourni par la Huntsman Cancer Foundation (CJ, CT), la subvention #RSG-13-025-01-CSM (RS) de l’American Cancer Society et la subvention T32 GM007464-36 (SS) du NIH.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Tubes de 1,5 ml ; | Denville Scientific | c2170 | Non dangereux. N’importe quel tube en plastique similaire de 1,5 m suffira. |
| 10x Saline tamponnée au phosphate (PBS) | Sigma Aldrich | P5493 | Non dangereux. |
| Anticorps anti-caspase-3-3 humaine activée | Scientific BDB559565 | Peut être nocif en cas d’inhalation ou d’ingestion. | |
| Anticorps monoclonal a-GFP (souris) | Life Technologies | 33-2600 | Peut être nocif en cas d’inhalation ou d’ingestion. |
| Protéine neuronale humaine a-HuC/HuD, souris IgG2b, monoclonale 16A11 - UNCONJ | Life Technologies | A21271 | Peut être nocive en cas d’inhalation ou d’ingestion. |
| Albumine bovine BSA Isolation contre les chocs thermiques ; | Amresco | CAS 9048-46-8 | Non dangereux. Peut également être acheté auprès de Bioexpress : 0332-1006 |
| Alexa Fluor 488 Donkey anti-souris IgG | Life Technologies | A11029 | Utilisation à une dilution de 1:200. ; Peut être nocif en cas d’inhalation ou d’ingestion. |
| Alexa Fluor 488 Donkey anti-Rabbit IgG | Life Technologies | A21206 | Utilisation à une dilution de 1:200. Peut être nocif en cas d’inhalation ou d’ingestion. |
| Alexa Fluor 568 Donkey anti-Rabbit IgG | Life Technologies | A10042 | Utilisation à une dilution de 1:200. Peut être nocif en cas d’inhalation ou d’ingestion. |
| Diméthylsulfoxyde (DMSO) | Sigma Aldrich | D8418 | Inflammable. |
| Dumont #5 Pinces en inox (pointes standard/droite) | Fine Science Tools | 11251-20 | Sharp ! |
| FBS HyClone Sérum de veau fœtal ; | Thermo-Fisher | SH3091003 | non dangereux. |
| Fisher Scientific Ocelot Rotator | Fisher Scientific | 05-450-21 | Tout rotateur avec contrôle manuel de la vitesse convient. |
| Sel d’aquarium océanique instantané | Petco | 1373684 | non dangereux. |
| Méthanol (sans acétone) | Sigma Aldrich | M1775 | Inflammable : toxique par inhalation, ingestion et contact. |
| Méthylcellulose | Sigma Aldrich | M0387-1006 | Non dangereux. |
| Paraformaldéhyde | Sigma Aldrich | P6148 | Inflammable : toxique par inhalation, ingestion et contact. |
| Sonde (coudée 80 courte/15,5 cm/0,15 mm de diamètre de pointe) | Fine Science Tools | 10140-02 | Tranchant ! |
| Pronase | Roche | 11459643001 | non dangereux. |
| Plaque Spot Pyrex | Fisher Scientific | 13-748B | Non dangereux. |
| Pipettes de transfert, Samco à usage général | Thermo-Scientific | 204 | Non dangereuses. |
| Triton X-100 | Sigma Aldrich | T8787 | Irritant : nocif par ingestion ou contact. |
| Tween-20 | Sigma Aldrich | P7949 | Non dangereux. Les autres marques incluent VWR #97063-872. |
Références
- Tait, S. W., Green, D. R. Mitochondria and cell death: outer membrane permeabilization and beyond. Nat. Rev. Mol. Cell Biol. 11, 621-632 (2010).
- Taylor, R. C., Cullen, S. P., Martin, S. J. Apoptosis: controlled demolition at the cellular level. Nat. Rev. Mol. Cell Biol. 9, 231-241 (2008).
- Eimon, P. M., et al. Delineation of the cell-extrinsic apoptosis pathway in the zebrafish. Cell Death Differ. 13, 1619-1630 (2006).
- Jette, C. A., et al. BIM and other BCL-2 family proteins exhibit cross-species conservation of function between zebrafish and mammals. Cell Death Differ. 15, 1063-1072 (2008).
- Kratz, E., et al. Functional characterization of the Bcl-2 gene family in the zebrafish. Cell Death Differ. 13, 1631-1640 (2006).
- Sidi, S., et al. Chk1 suppresses a caspase-2 apoptotic response to DNA damage that bypasses p53, Bcl-2, and caspase-3. Cell. 133, 864-877 (2008).
- Zhao, X., et al. Interruption of cenph causes mitotic failure and embryonic death, and its haploinsufficiency suppresses cancer in zebrafish. J. Biol. Chem. 285, 27924-27934 (2010).
- Yager, T. D., Ikegami, R., Rivera-Bennetts, A. K., Zhao, C., Brooker, D. High-resolution imaging at the cellular and subcellular levels in flattened whole mounts of early zebrafish embryos. Biochem. Cell Biol. 75, 535-550 (1997).
- Furutani-Seiki, M., et al. Neural degeneration mutants in the zebrafish, Danio rerio. Development. 123, 229-239 (1996).
- Sorrells, S., et al. Ccdc94 Protects Cells from Ionizing Radiation by Inhibiting the Expression of p53. PLoS Genet. 8, (2012).
- Gavrieli, Y., Sherman, Y., Ben-Sasson, S. A. Identification of programmed cell death in situ via specific labeling of nuclear DNA fragmentation. J. Cell Biol. 119, 493-501 (1992).
- Cole, L. K., Ross, L. S. Apoptosis in the developing zebrafish embryo. Dev. Biol. 240, 123-142 (2001).
- Abrams, J. M., White, K., Fessler, L. I., Steller, H. Programmed cell death during Drosophila embryogenesis. Development. 117, 29-43 (1993).
- Beers Jr, R. F., Hendley, D. D., Steiner, R. F. Inhibition and activation of polynucleotide phosphorylase through the formation of complexes between acridine orange and polynucleotides. Nature. 182, 242-244 (1958).
- Delic, J., Coppey, J., Magdelenat, H., Coppey-Moisan, M. Impossibility of acridine orange intercalation in nuclear DNA of the living cell. Exp. Cell Res. 194, 147-153 (1991).
- Westerfield, M. The Zebrafish Book. , University of Oregon Press. Eugene, OR. (1993).
- Shin, J., Park, H. C., Topczewska, J. M., Mawdsley, D. J., Appel, B. Neural cell fate analysis in zebrafish using olig2 BAC transgenics. Methods Cell Sci. 25, 7-14 (2003).
- Park, H. C., et al. Analysis of upstream elements in the HuC promoter leads to the establishment of transgenic zebrafish with fluorescent neurons. Dev. Biol. 227, 279-293 (2000).
Réimpressions et autorisations
