Nous fournissons une méthode de base reproductible pour la microscopie à long terme du cycle de vie sexuel de la levure à fission. Avec des ajustements mineurs décrits, le protocole présenté permet de concentrer la recherche sur différentes étapes du processus de reproduction.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Microscopie de levure Fission Lifecycle sexuelle
* These authors contributed equally
Dans cet article
Résumé
Résumé
La levure à fission Schizosaccharomyces pombe a été un système modèle inestimable dans l’étude de la régulation de la progression du cycle cellulaire mitotique, de la mécanique de la division cellulaire et de la polarité cellulaire. De plus, les expériences classiques sur sa reproduction sexuée ont donné des résultats essentiels à la compréhension actuelle de la recombinaison de l’ADN et de la méiose. Des analyses plus récentes de l’accouplement de levures à fission ont soulevé des questions intéressantes sur les mécanismes de réponse aux stimuli extrinsèques, la croissance cellulaire polarisée et la fusion cellule-cellule. Pour étudier ces sujets en détail, nous avons développé un protocole simple pour la microscopie de l’ensemble du cycle de vie sexuelle. La méthode décrite ici est facilement ajustée pour étudier des étapes d’accouplement spécifiques. Brièvement, après avoir été cultivées jusqu’à la phase exponentielle dans un milieu riche en azote, les cultures cellulaires sont déplacées vers un milieu privé d’azote pendant des périodes de temps adaptées à l’étape du cycle de vie sexuel qui sera explorée. Les cellules sont ensuite montées sur des chambres de tampons d’agarose personnalisées et faciles à construire pour l’imagerie. Cette approche permet de surveiller les cellules depuis le début de l’accouplement jusqu’à la formation finale des spores.
Introduction
Bien que l'échange génétique entre deux cellules est l'événement central dans la reproduction sexuée, elle repose sur une chaîne d'événements qui favorisent la différenciation des cellules, permettent le choix du partenaire, réalisent la fusion cellule-cellule et de maintenir la stabilité du génome. Ainsi , le cycle de vie sexuelle se présente comme un système modèle pour étudier un certain nombre de questions biologiques en ce qui concerne les commutateurs de développement, réponse à des stimuli extrinsèques, la fusion de la membrane plasmique, la ségrégation des chromosomes, etc. Exploring la levure de fission de cycle sexuel pour étudier ces phénomènes apporte les avantages de la génétique puissant système de modèle, bien établi des approches à haut débit et la microscopie sophistiquée. Le sexe dans la levure de fission est un événement hétérotypique entre un P-cellulaire et un M-cellulaire des types d'accouplement distincts. Les deux types de cellules expriment différemment un certain nombre de gènes 1,2 , y compris ceux pour la production du P- sécrétée et M-phéromones, phéromone-récepteurs Carte3 et Mam2 ainsi que phéromone-proteaSES Sxa1 et Sxa2. Homothalliques souches telles que la souche H90 couramment utilisée, portent l'information génétique pour les deux types d'accouplement en un seul génome et les cellules subissent un schéma complexe de commutation de type conjugaison au long du cycle mitotique (passé en revue dans réf. 3). Isolats multiples de hétérothallique levure de fission que rarement ou jamais changer le type d'accouplement sont également couramment utilisés 4, le plus en évidence le h + N (type P) et h -S (type M) souches.
Dans la levure de fission, l'entrée dans le cycle de vie sexuelle est sous la réglementation nutritionnelle stricte. Seules les cellules de levure fission azote affamés arrêtent la reproduction mitotique et produisent des phéromones diffusibles pour signaler la présence d'un partenaire d'accouplement et de promouvoir d' autres étapes du cycle sexuel (revu en. Ref 5). Privation d'azote de-refoule le régulateur transcriptionnel clé de Ste11 accouplement qui agit comme un commutateur et favorise le développement eXpression d'accouplement des gènes spécifiques , y compris le récepteur de phéromone et la phéromone des gènes de production 6,7. L' engagement phéromone-récepteur active la protéine du récepteur couplé à G-alpha et la signalisation MAPK aval qui améliore encore l' activité transcriptionnelle Ste11 8-10, augmentant ainsi la production de phéromone dans une rétroaction positive entre les partenaires d'accouplement. Les niveaux de phéromone sont cruciales pour induire différents états de polarisation de la cellule en régulant l'organisateur principal de la polarité cellulaire, la Rho-famille GTPase Cdc42 11. Lors de l'exposition à de faibles concentrations de phéromone, Cdc42 actif est visualisé dans les patchs dynamiques explorant la périphérie de la cellule, et pas de croissance cellulaire est observé à ce stade. niveaux de phéromone accrus favorisent la stabilisation de l'activité Cdc42 à une seule zone et à la croissance d'une projection polarisée, dite shmoo, qui apporte des cellules partenaires en contact. Par la suite, les deux partenaires d'accouplement haploïdes fusionnent pour former un zygote diploïde. Des travaux récents révèle the l' existence d'une nouvelle structure essentielle pour la fusion de l' actine qui est assemblé par la Formin induite par l' accouplement-FUS1 12. Cette mise au point de fusion se concentre processus dépendants de type V myosine et positionne le mécanisme de dégradation de la paroi cellulaire, permettant ainsi le remodelage de la paroi cellulaire pour permettre plasma contact membrane sans lyse cellulaire 12. Lors de la fusion cellule-cellule, les noyaux entrent en contact et subissent caryogamie. Un mouvement important va-et-vient dynein dépendant du noyau à l' intérieur du zygote (le mouvement de queue de cheval) favorise alors l'appariement des chromosomes homologues de 13,14, qui est suivie par la méiose. Enfin, les quatre produits de la méiose sont emballés dans des spores individuelles pendant la sporulation.
En raison de sa complexité et les nombreuses étapes, un suivi détaillé de l'accouplement a été difficile. Deux difficultés notables sont que l'ensemble du processus prend bien plus de quinze heures, et que les cellules sont difficiles à synchroniser. Ces difficulties sont contournées par des approches de microscopie à cellule unique. Voici un protocole général pour enquêter sur le cycle de vie sexuelle dans la levure de fission est présenté. Avec quelques ajustements mineurs, ce protocole permet l'étude de toutes les différentes étapes du processus, à savoir l'induction du produit du gène d'accouplement, la polarisation de la cellule et l'appariement entre les sœurs cellules après commutation du type d'accouplement et entre les partenaires non-soeur, fusion cellule-cellule, et post-fusion queue de cheval mouvement, la méiose et la sporulation. Cette méthode permet de 1) facilement visualiser les protéines marquées par fluorescence dans le temps avant, pendant et après la fusion; 2) discriminer le comportement des cellules du type opposé de l'accouplement; et 3) mesurer et quantifier les paramètres tels que shmooing, l'accouplement, la fusion ou de l'efficacité de la sporulation.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
analyse de Microscopie de la reproduction sexuée fission de levure
1. Préparation des médias
- Préparer le milieu de sporulation minimum (MSL-N) 15 en mélangeant les composants suivants: glucose: 10 g / l, KH 2 PO 4: 1 g / l, NaCl: 0,1 g / l, MgSO 4 · 7H 2 O: 0,2 g / L. Ajouter oligo - éléments (10.000 fois ): 100 pi / L, vitamines (1,000x): 1 ml / L, et 0,1 M CaCl 2 ml / L. Filtre-stériliser en utilisant un filtre de taille de 0,22 um des pores et conserver à température ambiante (RT).
- Utilisez les vitamines suivantes (1,000x) stock: pantothénate: 1 g / L, acide nicotinique: 10 g / L, inositol: 10 g / L, biotine: 10 mg / L. Filtre-stériliser en utilisant un filtre de taille de 0,22 um des pores et conserver à 4 ° C.
- Utilisez les oligo - éléments suivants (10.000 fois ) stock: Acide borique: 5 g / L, MnSO 4: 4 g / L, ZnSO 4 · 7H 2 O: 4 g / L, FeCl 2 · 6H 2 O: 2 g / L MoO 3: 0,4 g / L, KI: 1 g / l, CuSO4· 5H 2 O: 0,4 g / L, acide citrique: 10 g / l. Filtre-stériliser en utilisant un filtre de taille de 0,22 um des pores et conserver à 4 ° C.
- Préparer MSL-N Agarose 2% (utilisé pour fabriquer des chambres de pad agarose) en combinant 10 ml de MSL-N avec 0,2 g d'agarose. Faire fondre pour ~ 2 min à puissance élevée dans un four à micro-ondes jusqu'à dissolution d'agarose et aliquotes de 0,5 ml dans des tubes à centrifuger. Stocker à température ambiante.
- Préparer le milieu de sporulation minimum avec de l' azote (MSL + N) à partir MSL-N par addition de (NH 4) 2 SO 4: 1 g / l Leucine: 0,225 g / l, adenine: 0,225 g / l, uracile: 0,225 g / l . Filtre stériliser en utilisant un filtre de 0,22 um de taille des pores. Stocker à température ambiante.
Nota: Leucine, de l'adénine et l'uracile sont ajoutés à ce milieu pour permettre la croissance des souches auxotrophes. Supplément amino-acide supplémentaire devrait être inclus si la souche utilisée porte une auxotrophie distincte (par exemple his3Δ). S'il vous plaît noter également que le travail avec des souches entièrement prototrophe est recommandée, car seulementces souches permettront une grande efficacité de l'accouplement. - Préparer 200 ml valap pour la chambre d'étanchéité. Dans un bécher ajouter des poids égaux de la lanoline, de la vaseline (ou autre vaseline) et de paraffine. Chauffer le mélange à basse température et remuer de temps en temps jusqu'à ce que bien mélangé. Aliquoter le mélange dans plusieurs petites boîtes de Pétri. Stocker à température ambiante.
2. La culture Fission souches de levure pour les expériences de Mating (figure 1).
- Jour 1, Soirée:
Inoculer souches fraîchement striées de milieux solides dans des tubes de culture contenant 3 ml de MSL + N. Utiliser des tubes à fond plat d'environ 2,5 cm de diamètre. Utilisez d'autres tubes de culture ou flacons avec un volume de culture adapté. Incuber une nuit (O / N) avec agitation à 25 ° C, 200 rpm. Si vous travaillez avec des souches hétérothallique, inoculer séparément.- Diluer suspensions cellulaires dans les médias le lendemain matin pour faire en sorte que les cultures ont une densité optique mesurée à 600 nm (DO600) de 0,4-0,8 dans la soirée.
Remarque:OD 600 mesures comme un proxy de concentration cellulaire pour la levure de fission sont linéaires dans la gamme d'environ 0,1-1,0. Pour notre DO 600 = 0,1 spectrophotomètre correspond à 1,4 x 10 6 cellules par ml. Ainsi, si OD initial 600 lit sont en dehors de cette plage échantillons doivent être dilués / concentré pour des mesures fiables.
- Diluer suspensions cellulaires dans les médias le lendemain matin pour faire en sorte que les cultures ont une densité optique mesurée à 600 nm (DO600) de 0,4-0,8 dans la soirée.
- Jour 2, Soirée:
Diluer cellules dans 20 ml de MSL + N médias à OD 600 = 0,025 dans 100 ml flacons. Incuber souches O / N à 30 ° C, 200 rpm.
Note: les cultures de cellules de type sauvage devrait atteindre 600 OD ~ 0,8 le lendemain matin (15 heures plus tard). Si vous travaillez avec des souches avec plus de temps de génération de régler la dilution en conséquence. - Jour 3, Matin:
Mesurer la DO 600 pour vérifier que les cultures ont une densité de cellules de OD 600 ~ 0,8. Si vous travaillez avec des souches hétérothallique, mélanger un nombre égal de cellules partenaires. cellules à granules à 1000 xg et le transfert à un 1,5 mltube. Laver les cellules à trois reprises dans 1 ml de milieu MSL-N. Resuspendre les cellules dans 3 ml de milieu MSL-N et on dilue les cellules jusqu'à DO600 = 1,5.- Pour surveiller l'accouplement entre les cellules sœurs directement monter des cellules pour l'imagerie (voir Protocole Section 2.4). Utiliser des souches H90 homothalliques, dans lequel la commutation de type sexuel aura lieu au cours des divisions mitotiques survenant après la privation d'azote. Montage immédiate de cellules sur le pad agarose assure que, après la division cellulaire, les cellules-soeur restent à côté de l'autre.
- Pour surveiller la polarisation des cellules (la dynamique d'exploration et shmooing) incuber 1-3 ml de culture de cellules à 30 ° C, 200 rpm pendant 3-4 heures avant les cellules de montage pour l'imagerie. Au sein de ces 3-4 heures, la dernière division mitotique aura eu lieu. Quelques cellules auront lancé la polarisation, mais la plupart seront simplement à partir de leur dynamique de polarisation exploratoires.
- Pour surveiller la fusion cellule-cellule incuber 1-3 ml de culture de cellules à 30 ° C, 200 rpm pendant 4-6 heures priou à des cellules de montage pour l'imagerie.
- Surveiller les événements post-fusion incubent 1-3 ml de cultures de cellules à 30 ° C, 200 rpm pendant 8 heures avant les cellules de montage pour l'imagerie.
- Pour surveiller la réponse à une concentration de phéromone spécifique (uniquement pour les souches hétérothalliques) incuber pendant 3 ml de culture cellulaire à 30 ° C, 200 tpm pendant 3 à 4 heures avant la fixation des cellules pour l'imagerie.
- Retirez le tube de microcentrifugation MSL-N contenant du bloc C de chaleur de 95 ° (voir la section 2.4.1 Protocole. Ci-dessous). Ajouter P-facteur ou facteur M à la concentration désirée directement dans la NMM N-agarose fondu. Bien mélanger par tourbillonnement avant la préparation de pad immédiat.
- Après le montage cellulaire, incuber le pad pendant 15-30 min à 25 ° C avant l'imagerie. P-facteur et le facteur M, les phéromones ont été utilisés à partir d'une solution mère de 1 mg / ml dans le méthanol.
Remarque: Si vous travaillez avec des souches mutantes des temps d'incubation peuvent varier. Agglomérante de cellules peut se produire après une incubation prolongée de liquide media et peut être particulièrement forte dans certaines souches mutantes. les cellules agglomérées ne peuvent pas être déposées sur des tampons d'agarose en une seule couche et sont donc difficiles à autofocus et de l'image. En cas de grande agglutination cellulaire monter des cellules sur des tampons d'agarose immédiatement après lavages et remise en suspension dans un milieu dépourvu d'azote (comme dans le Protocole Section 2.3.1.) Et les incuber à 30 ° C avant l'imagerie.
- Cellules pour l'imagerie de montage:
- Préparer MSL-N tampons d' agarose 16 par fusion d' une partie aliquote dans un bloc thermique à 95 ° C pendant 10 à 15 minutes et en ajoutant 200 pi entre deux lames de verre séparées par des entretoises (figure 1B). Utiliser des entretoises ayant une épaisseur de 0,5 mm ~. Pour effectuer des entretoises, utiliser des bandes découpées dans du carton, tel que celui fourni avec des enzymes de restriction.
- Pellet 100 pi de cellules à 1000 g pendant 1 min, retirer le surnageant et les cellules dans résiduelle moyenne 2-4 pi remettre en suspension. Ne pas remettre en suspension dans un milieu frais comme il retardeaccouplement.
- Après 2-3 min retirer soigneusement les entretoises et la lame de verre supérieure. Si plusieurs souches doivent être montés, préparer la cellule se concentre avant de préparer le tampon d'agarose.
- Ajouter 1 pi de cellules au tampon et attendre jusqu'à ce que la goutte commence à sécher (~ 1 min) avant de recouvrir avec une couverture de glissement et d'étanchéité avec valap.
- Laissez le pad reposer pendant au moins 30 minutes avant l'imagerie à 25 ° C ou RT.
- Pour obtenir un mélange de cellules à différents stades de l'accouplement, faire un pad immédiatement après lavages dans MSL-N (voir la section 2.3.) Et incuber à 18 ° CO / N (~ 15 h). Cette approche est utile pour l'imagerie des cellules à des stades d'accouplement distincts avec une haute résolution temporelle ou des échantillons avec un signal faible.
Imagerie 3. cellules vivantes de Mating cellules de levure
- Ajuster l'image Réglages d'acquisition.
Remarque: les paramètres d'acquisition d'images présentées ici ont été optimisés pour la plate-forme DeltaVision composée d'une mesure Olympus IX-71microscope inversé avec le Plan Apo 60x / 1,42 NA ou U-Plan Apo 100X / 1.4 Objectifs NA, une caméra CoolSNAP HQ2 et un aperçu SSI 7 couleurs unité combinée illuminateur. Le matériel est contrôlé par Softworx v4.1.2 qui permet également une mise au point numérique.- Veiller à ce que les intervalles de mise au point automatique ne dépassent pas 15 min depuis le Z-dérive dans le temps plus long peut dépasser la capacité du système de mise au point automatique du logiciel. Si vous utilisez un système de mise au point automatique basé sur le matériel, utiliser des intervalles plus grands.
- Régler l'intervalle d'imagerie. Prenez des images toutes les 10 min pour ~ 15 heures en tant que point de départ lorsque l'on travaille avec une protéine marquée par fluorescence pour la première fois. Cet intervalle donne un bon aperçu du processus d'accouplement entier sans blanchissement.
- Image avec des intervalles de 5 minutes ou moins longues de manière plus précise les événements temporels tels que la fusion. Des intervalles plus courts nécessitent fluorophores forts permettant des temps d'exposition faible et peu de blanchiment. Pour l'imagerie avec des intervalles inférieurs à 1 min éviter O / N microscopieet au lieu de préparer un mélange de toutes les étapes d'assemblage tel que décrit dans la section 2.4.6 Protocole.
- Ajuster l'image du temps d'exposition. temps d'exposition d'essai entre 50 et 300 msec. But de trouver un équilibre entre le rapport et le photoblanchiment signal-bruit pour atteindre un grand nombre de points dans le temps avec un signal discernable (généralement plus de 100).
- Régler Z-tronçonnage. Sections toutes les 0,3 um couvrant 5 um fournissent une bonne profondeur d'imagerie. Notez que d'autres augmentations photo-dommages de Z-sectionnant, qui peut être minimisé en utilisant l'OAI (intégration de l'axe optique - une acquisition de balayage unique de la profondeur de l'échantillon total). Bon système auto-focus réduit le besoin de beaucoup de Z-sections et est fortement recommandée.
- Conseils pour l'étude Comportements Mating type spécifiques:
- Pour les souches hétérothalliques, l' utilisation h- et h , les cellules exprimant + fluorophores distincts, de sorte que les deux types de cellules peuvent être distingués. Utiliser tout fluoropho codé génétiquementre exprimée comme une version cytosolique ou la fusion d'une protéine endogène, bien que nous avons eu un bon succès avec sfGFP, une variante de pliage rapide de la GFP 17. Protéines endogènes sont généralement marqués à leur locus génomique endogène par recombinaison homologue 14.
- Pour les souches homothalliques, d' exprimer une protéine fluorescente cytosolique codé génétiquement sous le contrôle de promoteurs spécifiques d' un type d'accouplement , tels que ceux des gènes de récepteurs de phéromone et carte3 mam2 pour entraîner l'expression dans des cellules P et M, respectivement. Les promoteurs de map3 et mam2 sont inactifs pendant la croissance végétative et sont induites sur la faim d'azote 18,19. Les constructions qui contrôlent l'expression de la GFP cytosolique ou mCherry sous le contrôle de ces promoteurs sont généralement intégrés dans un locus génomique (ura4, leu1) qui ne gêne pas la progression normale du cycle de vie sexuelle 12.
- fluorophores cytosoliques spécifiques Utilisation du type d'accouplement (comme dans la section Protocole 3.2.2) afin de déterminer le moment précis de la fusion cellulaire visualisés comme le transfert de signal fluorescent d'une cellule partenaire à l'autre.
4. Quantification de Mating et Fusion Efficiencies
- Pour quantifier l' accouplement et la fusion efficacité 11,12, les cellules au comptant directement après MSL-N laver sur MSL-N tampons d' agarose, comme à l' étape 2.3.1 ci - dessus, et laisser reposer pendant 24 heures à 25 ° C avant l'imagerie (figure 1A). En utilisant ce protocole de type sauvage efficacité souche d'accouplement homothallique atteint ~ 60% et la fusion d'efficacité de 99%. Pour tester si une diminution de ces valeurs observées dans les souches mutantes un phénotype reflète terminal ou un retard, répéter l'expérience avec une durée d'incubation de 36 heures.
- Calculer l'efficacité que l'accouplement
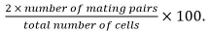 paires de Mating comprennent zygotes, asques, et des paires de cellules non fusionnées identifiées à partirleur position et leur croissance vers les uns des autres.
- Calculer l'efficacité de fusion que
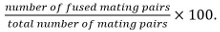
Nota: Les paires d'accouplement fusionnées sont identifiées par leur capacité à former des spores, si on sait que le mutant à l'étude n'a aucune influence sur la sporulation. Si sporulation ne peut pas être utilisé comme lecture, la fusion est déterminée en observant la propagation d'un marqueur cytosolique exprimé en un seul partenaire d'accouplement dans les deux partenaires.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
Fission Yeast croissance et Mating Dynamics lors de l'enlèvement d'une source d'azote
Comme la famine d'azote est une condition préalable à l' initiation de la reproduction sexuée dans la levure de fission, de type sauvage souche h90 homothallique a été contrôlée sur passage de riche en azote à moyenne d'azote-privé (Figure 2), suivant le protocole décrit dans la figure 1. En bref, les cellules ont été cultivées O ...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
Les conditions environnementales, et la disponibilité des nutriments, en particulier, affectent fortement la physiologie fission de la levure. Azote famine est nécessaire à l' engagement de la reproduction sexuée et conduit à des changements frappants dans la progression du cycle cellulaire mitotique (Réf. 21 et figure 2) au départ. Lors de l' élimination de l' azote de la population en croissance exponentielle, la taille des cellules à division diminue rapidement (figure ...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont pas d’intérêts financiers concurrents.
Remerciements
AV a été soutenu par une bourse de recherche postdoctorale EMBO à long terme. La recherche dans le laboratoire Martin est financé par une subvention de démarrage du CER (GeometryCellCycle) et une subvention nationale suisse Science Foundation (31003A_155944) à SGM.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Glucose | Sigma-Aldrich | G8270-10KG | |
| KH2PO4 | Sigma-Aldrich | 1.05108.0050 | |
| NaCl | Sigma-Aldrich | 71381 | |
| MgSO4• ; 7H2O | Sigma-Aldrich | 63140 | |
| CaCl2 | Sigma-Aldrich | 12095 | |
| Pantothénate | AppliChem | A2088,0025 | |
| Acide nicotinique | AppliChem | A0963,0100 | |
| Inositol | AppliChem | A1716,0100 | |
| Biotine | AppliChem | A0967,0250 | |
| Acide borique | Sigma-Aldrich | B6768-1KG | |
| MnSO4 | AppliChem | A1038,0250 | |
| ZnSO4• ; 7H2O ; | Sigma-Aldrich | Z4750 | |
| FeCl2• ; 6H2O | AppliChem | A3514,0250 | |
| Oxyde de molybdène (VI) (MoO3) | Sigma-Aldrich | 69850 | |
| KI | AppliChem | A3872,0100 | |
| CuSO4• ; 5H2O | AppliChem | A1034,0500 | |
| Acide citrique ; | AppliChem | A2344,0500 | |
| Agarose | Promega | V3125 | |
| (NH4)2SO4 ; | Merck | 1.01217.1000 | |
| L-Leucine | Sigma-Aldrich | L8000-100G | |
| Sel d’Hémisulfat Adénine, mini 99 % | Sigma-Aldrich | A9126-100G | |
| Uracile ; | Sigma-Aldrich | U0750 | |
| Lanoline | Sigma-Aldrich | L7387 | |
| Vaseline | Reactolab | 92045-74-4 | |
| Paraffine | Reactolab | 7005600 |
Références
- Mata, J., Bahler, J. Global roles of Ste11p, cell type, and pheromone in the control of gene expression during early sexual differentiation in fission yeast. Proc Natl Acad Sci U S A. 103 (42), 15517-15522 (2006).
- Xue-Franzen, Y., Kjaerulff, S., Holmberg, C., Wright, A., Nielsen, O. Genomewide identification of pheromone-targeted transcription in fission yeast. BMC Genomics. 7, 303(2006).
- Klar, A. J. Lessons learned from studies of fission yeast mating-type switching and silencing. Annu Rev Genet. 41, 213-236 (2007).
- Beach, D. H., Klar, A. J. Rearrangements of the transposable mating-type cassettes of fission yeast. EMBO J. 3 (3), 603-610 (1984).
- Merlini, L., Dudin, O., Martin, S. G. Mate and fuse: how yeast cells do it. Open Biol. 3 (3), 130008(2013).
- Mochizuki, N., Yamamoto, M. Reduction in the intracellular cAMP level triggers initiation of sexual development in fission yeast. Mol Gen Genet. 233 (1-2), 17-24 (1992).
- Sugimoto, A., Iino, Y., Maeda, T., Watanabe, Y., Yamamoto, M. Schizosaccharomyces pombe ste11+ encodes a transcription factor with an HMG motif that is a critical regulator of sexual development. Genes Dev. 5 (11), 1990-1999 (1991).
- Kjaerulff, S., Lautrup-Larsen, I., Truelsen, S., Pedersen, M., Nielsen, O. Constitutive activation of the fission yeast pheromone-responsive pathway induces ectopic meiosis and reveals ste11 as a mitogen-activated protein kinase target. Mol Cell Biol. 25 (5), 2045-2059 (2005).
- Obara, T., Nakafuku, M., Yamamoto, M., Kaziro, Y. Isolation and characterization of a gene encoding a G-protein alpha subunit from Schizosaccharomyces pombe: involvement in mating and sporulation pathways. Proc Natl Acad Sci U S A. 88 (13), 5877-5881 (1991).
- Toda, T., Shimanuki, M., Yanagida, M. Fission yeast genes that confer resistance to staurosporine encode an AP-1-like transcription factor and a protein kinase related to the mammalian ERK1/MAP2 and budding yeast FUS3 and KSS1 kinases. Genes Dev. 5 (1), 60-73 (1991).
- Bendezu, F. O., Martin, S. G. Cdc42 explores the cell periphery for mate selection in fission yeast. Curr Biol. 23 (1), 42-47 (2013).
- Dudin, O., et al. A formin-nucleated actin aster concentrates cell wall hydrolases for cell fusion in fission yeast. J Cell Biol. 208 (7), 897-911 (2015).
- Chikashige, Y., et al. Telomere-led premeiotic chromosome movement in fission yeast. Science. 264 (5156), 270-273 (1994).
- Bahler, J., et al. Heterologous modules for efficient and versatile PCR-based gene targeting in Schizosaccharomyces pombe. Yeast. 14 (10), 943-951 (1998).
- Egel, R., Willer, M., Kjaerulff, S., Davey, J., Nielsen, O. Assessment of pheromone production and response in fission yeast by a halo test of induced sporulation. Yeast. 10 (10), 1347-1354 (1994).
- Tran, P. T., Marsh, L., Doye, V., Inoue, S., Chang, F. A mechanism for nuclear positioning in fission yeast based on microtubule pushing. J Cell Biol. 153 (2), 397-411 (2001).
- Pedelacq, J. D., Cabantous, S., Tran, T., Terwilliger, T. C., Waldo, G. S. Engineering and characterization of a superfolder green fluorescent protein. Nat Biotechnol. 24 (1), 79-88 (2006).
- Kitamura, K., Shimoda, C. The Schizosaccharomyces pombe mam2 gene encodes a putative pheromone receptor which has a significant homology with the Saccharomyces cerevisiae Ste2 protein. EMBO J. 10 (12), 3743-3751 (1991).
- Tanaka, K., Davey, J., Imai, Y., Yamamoto, M. Schizosaccharomyces pombe map3+ encodes the putative M-factor receptor. Mol Cell Biol. 13 (1), 80-88 (1993).
- Motegi, F., Arai, R., Mabuchi, I. Identification of two type V myosins in fission yeast, one of which functions in polarized cell growth and moves rapidly in the cell. Mol Biol Cell. 12 (5), 1367-1380 (2001).
- Sajiki, K., Pluskal, T., Shimanuki, M., Yanagida, M. Metabolomic analysis of fission yeast at the onset of nitrogen starvation. Metabolites. 3 (4), 1118-1129 (2013).
- Miyawaki, A., Nagai, T., Mizuno, H. Mechanisms of protein fluorophore formation and engineering. Curr Opin Chem Biol. 7 (5), 557-562 (2003).
- Dyer, J. M., et al. Tracking shallow chemical gradients by actin-driven wandering of the polarization site. Curr Biol. 23 (1), 32-41 (2013).
- Beta, C., Bodenschatz, E. Microfluidic tools for quantitative studies of eukaryotic chemotaxis. Eur J Cell Biol. 90 (10), 811-816 (2011).
- Lee, S. S., et al. Quantitative and dynamic assay of single cell chemotaxis. Integr Biol (Camb). 4 (4), 381-390 (2012).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
