Le but de cette étude est d'identifier les réseaux cérébraux distribués liés à la récompense en délimitant une technique immunohistochimique fiable en utilisant l'activation de c-fos cellulaire pour mesurer les changements simultanés dans les voies de la dopamine et sites terminaux après nouvelle ingestion de gras et de sucre chez les rats.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Détection simultanée de c-Fos Activation de Sites de récompense dopaminergique mésolimbique et mésocortical Après Naive sucre et de graisse Ingestion chez le rat
* These authors contributed equally
Dans cet article
Résumé
Résumé
Cette étude utilise l'activation de c-fos cellulaire pour évaluer les effets de l'ingestion de nouvelles graisses et de sucre sur le cerveau de la dopamine (DA) voies chez les rats. Apports de sucres et de graisses sont médiés par leurs attractions innées ainsi que les préférences apprises. dopamine du cerveau, en particulier méso-limbique et projections méso-corticale de l'aire tegmentale ventrale (VTA), a été impliqué dans ces deux réponses désappris et apprises. Le concept de réseaux cérébraux distribués, dans lequel plusieurs sites et systèmes émetteurs / peptides interagissent, a été proposé à la médiation apport alimentaire acceptable, mais il y a peu de preuves démontrant empiriquement ces actions. Ainsi, la consommation de sucre provoque immunoréactivité DA libération et augmente c-fos-like (FLI) à partir de chaque zones de projection VTA DA, y compris le noyau accumbens (NAC), amygdale (AMY) et médiale cortex préfrontal (CPFm), ainsi que le striatum dorsal. En outre, l'administration centrale des antagonistes sélectifs des récepteurs de DA dans ces sitess différentiellement réduire l'acquisition et l'expression des préférences gustatives conditionnées provoquées par des sucres ou de graisses. Une approche permettant de déterminer si ces sites ont interagi en tant que réseau de cerveau distribué en réponse à sucre ou la consommation de graisses serait simultanée évaluer si le VTA et ses principales zones de projection mesotelencephalic de DA (prélimbique et infralimbic CPFm, noyau et l'enveloppe du NAc, basolatéral et le centre-cortico-médial AMY), ainsi que le striatum dorsal afficherait coordonné et activation FLI simultanée après orale, l'apport inconditionnée d'huile de maïs (3,5%), le glucose (8%), le fructose (8%) et la saccharine (0,2 %) solutions. Cette approche est une première étape réussie dans l'identification de la possibilité d'utiliser l'activation de c-fos cellulaire simultanément sur les sites du cerveau pertinents pour étudier l'apprentissage récompense liée à l'ingestion d'aliments agréables au goût chez les rongeurs.
Introduction
Cerveau dopamine (DA) a été impliquée dans les réponses centrales à la consommation de sucres par un goût agréable proposé hédonique 1,2, 3 et l' habitude à base de 4,5 mécanismes d'action liée à l' effort. La voie DA primaire impliquée dans ces effets provient de l'aire tegmentale ventrale (VTA), et les projets vers le noyau accumbens de noyau (NAC) et la coquille, l'amygdale basolatérale et du centre-cortico-médial (AMY), et le prélimbique et médial infralimbic cortex préfrontal (CPFm) (voir les commentaires 6,7). Le VTA a été impliquée dans la prise de saccharose 8,9, et la libération de DA est observé la consommation de sucre suivant dans le NAC 10-15, AMY 16,17 et CPFm 18-20. La grosse prise stimule également DA NAC release 21, et un autre DA riche zone de projection du striatum dorsal (caudé-putamen) a également été associée à DA médiée alimentation 22,23. Kelley 24-27 a proposé que ces projets multipleszones d'ions de ce système DA médiée formé un réseau intégré et interactif cerveau distribués par le biais d' interconnexions étendues et intimes 28-34.
En plus de la capacité de DA D1 et D2 antagonistes des récepteurs pour réduire la consommation de sucres et de matières grasses 35-37 38-40, la signalisation DA a également été impliquée dans la médiation de la capacité des sucres et des graisses pour produire des préférences gustatives conditionnées (PCP) 41- 46. Microinjections d'un antagoniste des récepteurs de DA D1 dans le NAC, AMY ou CPFm 47-49 éliminent l' acquisition de la PCP induite par le glucose intragastrique. Considérant que microinjections de DA soit D1 ou D2 antagonistes des récepteurs dans le CPFm élimine l' acquisition de fructose-PCP 50, l'acquisition et l' expression de fructose-PCP sont différentiellement bloqués par les antagonistes de DA dans le CNA et AMY 51,52.
La technique 53,54 c-fos a été employée pour étudier activatio neuronaln induite par une consommation acceptable et de l'activation neuronale. Le terme «activation de c-fos" sera utilisé tout au long du manuscrit, et est défini sur le plan opérationnel par une augmentation de la transcription de c-Fos pendant la dépolarisation neuronale. L' apport de sucrose a augmenté fos-like immunoréactivité (FLI) dans le noyau de AMY central, le VTA ainsi que la coque, mais pas de base, du CNA 55-57. Alors que la consommation de saccharose chez les rats sham-alimentation a augmenté de manière significative FLI dans le AMY et le CNA, mais pas le VTA 58, saccharose ou glucose infusions intragastrique ont augmenté de manière significative FLI dans le CNA et les noyaux centraux et basolatéral de la AMY 59,60. Addition répétée de saccharose à l' accès chow prévu a augmenté FLI dans le CPFm ainsi que la coque du CNA et le noyau 61. Un paradigme concentration de rétrogradage sucrose a révélé que les plus grands FLI augmentations se sont produites dans la AMY basolatérale et NAC, mais pas le VTA 62. Après conditionnement, extinction de rewa naturelle liée au sucrerd comportements ont augmenté FLI dans le AMY basolatéral et le CNA 63. En outre, l' appariement la disponibilité du sucre à un ton abouti à la tonalité augmentant ensuite les niveaux FLI dans le AMY basolatérale 64. Un apport élevé en matières grasses a également augmenté FLI dans les sites du CNA et MPFC 65-67.
La plupart des études citées précédemment examiné le sucre et les effets de graisse sur l' activation de c-fos dans des sites uniques qui ne fournissent pas d' informations sur l' identification des réseaux cérébraux distribués liés récompense-24-27. En outre, la plupart des études ont également ne pas délimiter les contributions relatives des sous-régions du CNA (noyau et l'enveloppe), AMY (basolatérale et central-cortico-médial) et CPFm (prélimbique et infralimbic) qui pourraient être examinées par le avantage d'excellent, seule cellule de résolution spatiale dans c-Fos cartographie 68. Notre laboratoire 69 a récemment utilisé l' activation de c-fos et les modifications mesurées simultanément dans la voie VTA DA et son proprojec- zones (NAC, AMY et MPFC) après nouvelle ingestion de graisses et de sucres chez le rat. La présente étude décrit les étapes procédurales et méthodologiques pour analyser simultanément si l'exposition aiguë à six solutions différentes (huile de maïs, le glucose, le fructose, la saccharine, l'eau et un contrôle d'émulsion de graisse) serait différentiellement activer FLI dans les sous-régions du CNA, AMY, CPFm ainsi que le striatum dorsal. Cette détection simultanée des différences a permis la confirmation des effets significatifs sur FLI dans chaque site et déterminer si les changements dans un site particulier en corrélation avec les changements dans les sites connexes, fournissant ainsi un soutien pour un réseau de cerveau distribué 24-27. Ces procédures testées si le VTA, le prélimbique et infralimbic CPFm, le noyau et l'enveloppe du CNA, et AMY basolatéral et le centre-cortico-médial), ainsi que le striatum dorsal afficherait coordonné et activation FLI simultanée après orale, l'apport inconditionnée de glucose (8%), le fructose (8%), huile de maïs (3,5%) et de la saccharine (0,2%), des solutions.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
Ces protocoles expérimentaux ont été approuvés par le Comité soin et l'utilisation des animaux institutionnels attestant que tous les sujets et les procédures sont en conformité avec les National Institutes of Health Guide pour les soins et l'utilisation des animaux de laboratoire.
1. Sujets
- Achat et / ou de la race des rats mâles Sprague-Dawley (260-300 g).
- rats Maison individuellement dans des cages grillagées. Maintenir les sur une 12:12 h cycle lumière / obscurité avec chow de rat et de l' eau ad libitum.
- Attribuer la taille des échantillons appropriés (par exemple, n ≈ 6-8) au hasard en groupes.
2. Procédures d'appareils et d'admission d'essai
- Utilisez des tubes de centrifugeuse calibrés avec des bouchons en caoutchouc et un tube de sipper métallique angle de 45 ° pour fournir une mesure précise (± 0,1 ml) des solutions présentées. Fixez les cages à domicile par un ressort métallique tendu pour permettre la visibilité des étalonnages.
- Restreindre les rations alimentaires (~15 / g / jour) des rats pour réduire le poids à 85% de leur poids corporel initial pour accroître la motivation à consommer les solutions. Remarque: La réduction de poids devrait prendre entre 3-5 jours.
- Fournir des solutions pré-formation (10 ml) de 0,2% de saccharine pendant quatre jours au cours d'une session de 1 h afin de maximiser la probabilité que les rats échantillonner les solutions de test ultérieures avec court (moins de 1 min) latence.
- Confirmer l'écoulement à travers le tube de centrifugeuse en versant quelques gouttes.
- Peser les tubes avant et après chaque session pour obtenir une mesure d'admission.
- Effectuer un test d'admission au cinquième jour des sous-groupes recevant une des six solutions (10 ml, 1 h): a) l'eau, b) roman aromatisé (0,05% d'arôme de cerise) 0,2% de saccharine, c) 8% de fructose, d) 8 % de glucose, e) 3,5% d'huile de maïs en suspension dans 0,3% de gomme xanthane, et f) 0,3% de gomme xanthane.
- Veiller à ce que les solutions nutritives sont isocalorique; Ainsi, la concentration de 3,5% d'huile de maïs est isocalorique aux solutions de sucre 8%.
- Assurez-eà des rats solutions d'échantillons avec courte latence (moins de 1 min). Si cette exigence est pas remplie, puis jeter l'objet de l'étude.
3. Préparation des tissus
- Anesthésier chaque animal par une injection intra-péritonéale de pentobarbital 90 min après l'exposition initiale à chaque solution d'essai. Assurez-vous que les animaux sont correctement anesthésiés en démontrant que l'animal ne répond plus à ces réflexes que le retrait des pieds à pincement, clignotantes suite à la pression de la cornée directe ou secouer la tête à la stimulation de pinna profonde.
- Perfuser chaque animal transcardiaque comme décrit précédemment 69.
- Anesthetize rats avec une overdose de pentobarbital de sodium (65 mg / kg), retirer la cage thoracique et d' exposer la poitrine pour un accès libre au cœur 69.
- Placer l'aiguille dans le sommet de la valvule cardiaque gauche, et couper la veine cave. Administrer une solution tampon phosphate (PBS, ~ 180 ml) suivie d'une co fixateur tamponné au phosphatentaining paraformaldehyde à 4% (~ 180 ml).
- Assurez-vous que l'animal fait est perfusé correctement en examinant si le liquide quitte d'autres cavités, comme le nez, la bouche et les parties génitales. Remarque: la fixation correcte avec paraformaldéhyde sera accompagné par de grands mouvements musculaires. Si cela ne se produit pas, réajuster l'aiguille jusqu'à ce que cette réaction se produise.
- Retirez le cerveau du crâne rapidement en coupant la fourrure et peau loin du crâne. Utilisez rongeurs pour casser et retirer l'os du cerveau en mouvement de l'arrière vers l'avant. Le travail d'abord dans la zone située en dessous et derrière le cervelet, en veillant à ce que la gouge est entre l'os et la pie-mère méningée. Une fois le dessus et les côtés du crâne sont enlevés, utilisez une petite spatule pour soulever le cerveau de la base, et couper les nerfs crâniens avec de petits ciseaux. Veillez à ne pas endommager le cerveau tout en essayant d'enlever l'os.
- Fixer les cerveaux dans une solution de paraformaldéhyde 4% pendant une nuit à 4 ° C.Placer le cerveau dans un saccharose / solution de PBS 70% à 30% à la température ambiante jusqu'à ce qu'elles se déposent au fond du récipient.
- Bloquer le cerveau
- Retirez la partie rostrale du cerveau coupe caudale transversalement au bulbe olfactif.
- Retirer la partie caudale du cerveau couper transversalement au niveau du cervelet et la protubérance.
- Monter le cerveau coronale avec la partie caudale fixée à l'étape d'un microtome coulissant, et couper des coupes coronales (40 um) à travers le CPFm (2,86 à 2,20 mm rostrale à bregma), le noyau du CNA et de la coque et striatum dorsal (+ 1,76 à 1,60 mm rostrale à bregma), la AMY (-2,12 à -2,92 mm caudale à bregma), et le VTA (-5,20 à -5,60 mm caudale à bregma). Utilisez un cerveau de rat atlas 70 pour le guidage.
- Collecter sections flottantes dans les puits individuels d'une plaque de 24 puits rempli de PBS pour l' analyse immunohistochimique éventuelle 71. Utilisez Parafilm pour sceller le 24 nousplaque ll pour vérifier que le PBS ne s'évapore pas dans le récipient et sécher le cerveau. Stocker le tissu cérébral dans le 4 ° C.
4. Procédures de c-fos (Adapté de 71)
- Traiter chaque section avec 5 ml de 5% de sérum normal de chèvre et 0,2% de Triton X-100 dans du PBS pendant 1 h.
- Incuber les sections traitées avec des anticorps primaires (lapin anti-c-fos, 1: 5000) à 4 ° C pendant 36 h dans des puits contenant 1 ml de PBS.
- des sections de rinçage 3 fois avec du PBS (5 ml) pendant 10 min à chaque fois.
- Laisser incuber avec des anticorps secondaires (biotinylé de chèvre anti-lapin, 1: 200) à température ambiante pendant 2 h dans des puits contenant 1 ml de PBS.
- Rincer chaque section 3x dans du PBS (5 ml) pendant 10 min à chaque fois.
- Incuber les sections rincée pendant 2 heures dans un mélange de peroxydase de raifort-avidine disponible dans le commerce qui vient dans un kit composé de Avadin DH (100 ul) et de la Peroxydase biotinylée H Raifort (100 ul) dans 5 ml de PBS.
- Re-rincer les sections 3x dans PBS (5 ml) pendant 10 min à chaque fois.
- Faire réagir les sections avec 0,05% de diaminobenzidine (DAB) , en présence de 0,0015% de H 2 O 2 pendant 5 à 10 min, en fonction de la réactivité des tissus dans les puits contenant 5 ml de la solution DAB.
- Double-label les sections VTA. les incuber avec une tyrosine hydroxylase (TH) anticorps (anticorps de lapin anti-rat de TH, 1: 2000) dans du PBS (5 ml) pendant une nuit à 4 ° C.
- Rincer les sections 3x dans du PBS (5 ml) pendant 10 min à chaque fois.
- Laisser incuber avec des anticorps secondaires (chèvre biotinylé anti-lapin, 1: 200) dans du PBS (5 ml) à température ambiante pendant 2 heures.
- Rincer les sections 3x dans du PBS (5 ml) pendant 10 min à chaque fois.
- Visualiser les anticorps en utilisant un complexe anticorps-peroxydase du secondaire. Réagir avec une combinaison de 0,05% de DAB et une solution de sulfate de nickel de 0,3%, pendant 5 - 10 min, en fonction de la réaction du tissu dans les puits contenant 5 ml de la / solution NiCl DAB.
- Assurez-vous que la solution de DAB est vert clair couleur laiteuse de celle-cis la réaction avec le sulfate de nickel 0,3%. Si la solution est trop vert, puis la réaction sera trop sombre.
- Monter toutes les sections sur des lames revêtues de gélatine. Laissez-les sécher pendant la nuit, puis couvrir-dérapant avec quelques gouttes d'une solution de Toluène-Based (SCT).
- Code de glisse de sorte que la condition expérimentale est inconnue aux observateurs.
5. Détermination de c-fos immunoréactive Counts
- Attribuer paires d'observateurs impartiaux pour compter les neurones Fos-positifs dans ces régions d'intérêt (ROI): prélimbique CPFm, infralimbic CPFm, NAC core, NAC shell, les noyaux de AMY basolatéral, centre-cortico-médial AMY, striatum dorsal et VTA. Délimiter si c-Fos immunoréactivité était présent dans TH + et TH- cellules dans le VTA. La figure 1 donne une image de l' écran capturé du CNA du microscope.
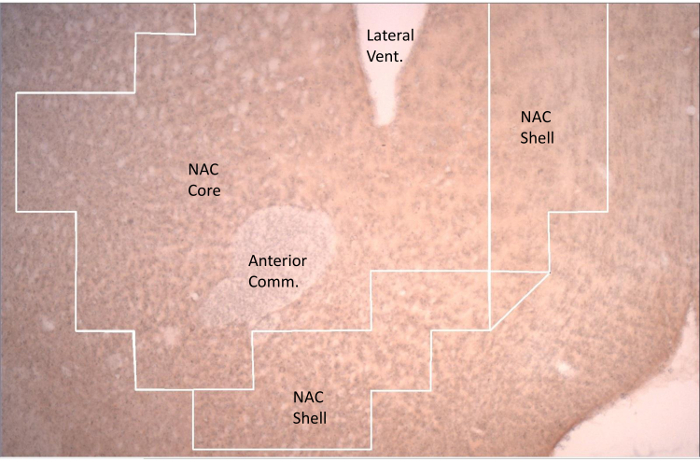
Figure 1. Section Représentant du noyau accumbens (NAC) Affichage régions d'intérêt soulignés par la grille par laquelle Counts c-fos sont fabriqués. La coque du CNA se trouve médial et ventralement au cœur du CNA. Le noyau du CNA encercle la commissure antérieure (Anterior Comm.). L'étendue ventrale du ventricule latéral (latéral Vent.) Est visible. S'il vous plaît cliquer ici pour voir une version plus grande de cette figure.
- Analyser au moins trois tranches représentatives par site commun à tous les animaux dans toutes les conditions de test.
- Utiliser un logiciel et d' un microscope optique pour analyser l' ensemble de la région pour chaque ROI en traçant un contour (figure 1).
- Pour un site donné, ouvrez l'application et cliquez sur le menu déroulant acquisition et cliquez sur "Image Live". Amener le retour sur investissement dans le foyer et cliquez sur l'écran pour établir un point de référence. Puis trace la région du cerveau choisie en utilisant la grille comme un guide. Une fois que la trace est terminée, compter les cellules (étapes 5.3.1.1 - 5.3.1.3).
- Double-cliquez sur l'icône du logiciel. Aller à la barre de menu, cliquez sur "Acquisition", puis "Image Live". Amener le retour sur investissement dans le foyer et cliquez sur l'écran pour établir un point de référence.
- Aller à la barre d'outils de la grille et cliquez sur "Grille d'affichage" et "étiquettes Utilisez la grille". Décrire le ROI avec une trace prédéterminée.
- Comptez toutes les cellules dans chaque zone de retour sur investissement, sélectionner un "+" dans la barre latérale de gauche pour tenir le compte des cellules c-fos. Cliquez sur chaque cellule individuellement pour enregistrer les chiffres. Considérons une cellule positive pour c-fos quand un cercle rouge foncé défini est observé (figure 1).
- Répétez ce processus pour chaque site.
- Enregistrez compte dans un cahier de laboratoire et sur l'ordinateur pour une analyse ultérieure. Aller à la barre de menu, cliquez sur "Fichier", "Enregistrer le fichier de données" pour enregistrer le tracé et compte.
- Pour un site donné, ouvrez l'application et cliquez sur le menu déroulant acquisition et cliquez sur "Image Live". Amener le retour sur investissement dans le foyer et cliquez sur l'écran pour établir un point de référence. Puis trace la région du cerveau choisie en utilisant la grille comme un guide. Une fois que la trace est terminée, compter les cellules (étapes 5.3.1.1 - 5.3.1.3).
- Veiller à ce que la fiabilité inter-évaluateurs (en utilisant la corrélation des comptages) des deux évaluateurs mal informés pour chaque section dans chaque ROI dépasse toujours 0,8.
6. Statistiques
- Évaluer base des apports de saccharine au cours des quatre premiers jours en utilisant une analyse des mesures répétées 1 de variance (Anova) comparant les apports saccharine des Jours 1, 2, 3 et 4 69.
- Comparer la consommation de saccharine (Jour 4) avec prises d'essai (Jour 5) des six groupes à l' aide d' un bloc randomisé 2-way ANOVA 69.
- Utilisez des comparaisons Tukey (p <0,05) pour déterminer les effets significatifs individuels 69.
- Déterminer la fiabilité inter-évaluateurs, puis utiliser les chiffres d'un observateur commun.
- Chiffres de c-fos moyenne pour les trois tranches représentatives pour chaque site 69.
- Effectuer un 1-way ANOVA de l'activation de c-fos induite par l'apport des six solutions (huile de 3,5% de maïs, 8% de glucose, 8% de fructose, 0,2% saccharine aromatisée, xale contrôle Nthan de gomme et de l' eau) pour le CPFm périlimbique 69.
- analyses parallèles répétées des six groupes pour infralimbic CPFm, NAC core, shell NAC, basolatérale AMY, central-cortico-médial AMY, VTA et striatum dorsal. Utilisez des comparaisons Tukey (p <0,05) pour révéler des effets significatifs individuels 69.
- Comparer la consommation d'huile de maïs à la fois la consommation d'eau et de l'apport de son agent de suspension, la gomme de xanthane. Comparez fructose et glucose prises à la fois avec la consommation d'eau et de l'apport de l'édulcorant non nutritif, la saccharine.
- Déterminer si des relations significatives entre les apports de la solution et l'activation de c-fos dans chacun des sites ont été observés en utilisant des corrélations r Bonferroni (p <0,05).
- comparer systématiquement compte c-fos dans le périlimbique et infralimbic cortex pré-frontal pour chaque animal dans le groupe de l'huile de maïs de 3,5%.
- Répéter les analyses systématiquement parallèles de chaque paire de six sites (VTA, striatum dorsal, infralimbic CPFm, périlimbique CPFm, noyau NAC, shell NAC, basolatérale AMY, central-cortico-médial AMY) pour l'huile de maïs de 3,5%.
- Répéter les analyses systématiquement parallèles de ces six sites pour les cinq autres conditions d'admission expérimentales (8% de glucose, 8% de fructose, 0,2% saccharine aromatisée, contrôle de la gomme de xanthane et de l'eau).
- Tirer parti du fait que les mêmes animaux se trouvant dans une condition de solution ont été évalués sur l'ensemble des sites, en déterminant des relations significatives entre l'activation de c-fos dans des solutions et à l'intérieur de chaque solution en utilisant des corrélations de Bonferroni r (p <0,05).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
Tous les résultats représentatifs décrits ci - dessous ont été publiés précédemment 69, et sont présentés de nouveau ici pour soutenir "preuve de concept" en indiquant l'efficacité de la technique.
Apports Solution
Des différences significatives dans les apports de la saccharine de base ont été observées au cours des quatre premiers jours pour tous les animaux (F (3108) = 57,27,...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
Le but de l'étude était de déterminer si la source (VTA) et des objectifs de projection de prosencéphale (NAC, AMY, CPFm) des neurones liés à la récompense-DA ont été simultanément activées après nouvelle ingestion de gras et de sucre chez les rats en utilisant la technique de c-fos cellulaire . La présente étude est une description détaillée des protocoles d'une étude publiée précédemment 69. Il a émis l' hypothèse que l'ADV, ses principales zones de projection à l'prélimbique et infralim...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs ont aucun intérêt financier concurrents.
Remerciements
Merci à Diana Icaza-Culaki, Cristal Sampson et Theologia Karagiorgis pour leur travail acharné sur ce projet.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Equipment | |||
| Rats Sprague-Dawley Charles | River Laboratories | CD-1 | |
| Wire Mesh Cages | Lab Products, Seaford, DE | 30-Cage | |
| rack Rat Chow | PMI Nutrition International | 5001 | |
| Taut Metal Spring | Lab Products, Seaford, DE | n/a | |
| Balance pour rats | Fisher Scientific Company | n/a | |
| Nalgene Centrifuge Tubes | Lab Products, Seaford, DE | 10-0501 | |
| Rubber Stopper | Lab Products, Seaford, DE | n/a | |
| Metal Sippers | Lab Products, Seaford, DE | n/a | |
| Saccharin | Sigma Chemical Co | 82385-42-0 | |
| Kool-Aid, Cerise | Kool-Aid | Commercial | |
| Kool-Aid, Raisin | Kool-Aid | Commercial | |
| Fructose | Sigma Chemical Co | F0127 | |
| Glucose | Sigma Chemical Co | G8270 | |
| Huile de maïs | Mazzola | Commercial | |
| Xanthan Gum | Sigma Chemical Co | 11138-66-2 | |
| Microtome coulissant | Microm International | n/a | |
| Neurolucida Caméra | MBF Bioscience | Application logicielle | |
| Lames recouvertes de gélatine | Fisher Scientific Company | 12-550-343 | |
| Verre de couverture | Fisher Scientific Company | 12-545-M | |
| Pinceaux en nylon doré | Loew-Cornell ; | 2037 | |
| Cheveux Naturels Sable ; | Loew-Cornell ; | 2022 | |
| 24 Plaques de puits | Fisher Scientific | 3527 | |
| Plaques 6 puits | Fisher Scientific | 3506 | |
| Bouteilles en pyrex 1 L | Fisher Scientific | 1395-1L | |
| Insert tissulaire (passoire à tissus) | Fisher Scientific | 7200214 | |
| Pipettes Eagle ; | World Precision Instruments | E10 pour 1-10μ ; | |
| Pipettes Eagle ; | World Precision Instruments | E100 pour 20-100μ ; | |
| Pipettes Eagle ; | World Precision Instruments | E200 pour 50-200μ ; | |
| Pipettes Eagle ; | World Precision Instruments | E1000 pour 100-1000μ ; | |
| Pipettes Eagle ; | World Precision Instruments | E5000 pour 1000-5000μ ; l ; | |
| Embouts universels .1-10 μ ; l | World Precision Instruments | 500192 | |
| Embouts Universels 5-200 μ ; l | World Precision Instruments | 500194 | |
| Embouts Universels 500-5 000 μ ; l | World Precision Instruments | 500198 | |
| Blade Vibroslice 100 | World Precision Instruments | BLADE | |
| DPX Mounting Medium ; | Microscopie électronique ; | 13510 | |
| Tubes à centrifuger de 15 ml | Biologix Research Co. | 10-0501 | |
| Boîtes à diapositives | Biologix Research Co. | 41-6100 | |
| Agitateur orbital ; | Madell Corporation ; ; | ZD-9556 | |
| bateaux de pesée ; | Fisher Scientific | 02-202-100 | |
| Pipettes jetables 5 ml | Fisher Scientific | 13-711-5AM | |
| Logiciel d’investigation stéréo | Micro Bright Field | Application logicielle | |
| Nom | Entreprise | Numéro de catalogue | Commentaires |
| forts | |||
| paraformaldéhyde granulaire | Fisher Scientific | 19210 | |
| NaCl | Fisher Scientific | S271-1 | |
| Phophate de sodium monobasique | Fisher Scientific | S468-500 | |
| Phosphate de sodium Diphasique | Fisher Scientific | BP332-500 | |
| Hydrogène Peroxyde ; | Fisher Scientific | H324-500 | |
| SafeClear II ; | Fisher Scientific | 23-044-192 | |
| Méthanol ; | Fisher Scientific | A412-1 | |
| Vecteur | sérique de chèvre normal | S-1000 | |
| Biotinylé Anti-Lapin IgG (H+L) | Vecteur | BA-1000 | |
| ABC Kit Peroxydase | Vecteur | PK-4000 | |
| Anti-cFos (Ab-5) Lapin | EMD chem/Cal Biochem | PC38 | |
| Triton X 100 | SigmaAldrich | X-100 | |
| 3,3' chlorhydrate de diaminobenzidine tétra ; | SigmaAldrich | D5905 | |
| Hydroxyde de sodium | SigmaAldrich | 5881 | |
| Anticorps TH primaire | EMD Millipore | AB152 | |
| Euthosol | Virbac AH |
Références
- Koob, G. F. Neural mechanisms of drug reinforcement. Ann. N.Y. Acad. Sci. 654, 171-191 (1992).
- Wise, R. A. Role of brain dopamine in food reward. Philos. Trans. R. Soc. Lond. B. Biol. Sci. 361, 1149-1158 (2006).
- Salamone, J. D., Correa, M. The mysterious motivational functions of mesolimbic dopamine. Neuron. 76, 470-485 (2012).
- Horvitz, J. C., Choi, W. Y., Morvan, C., Eyny, Y., Balsam, P. D. A "good parent" function of dopamine: transient modulation of learning and performance during early stages of training. Ann. N.Y. Acad. Sci. 1104, 270-288 (2007).
- Wickens, J. R., Horvitz, J. C., Costa, R. M., Killcross, S. Dopaminergic mechanisms in actions and habits. J. Neurosci. 27, 8181-8183 (2007).
- Bjorklund, A., Dunnett, S. B. Dopamine neuron systems in the brain: an update. Trends Neurosci. 30, 194-202 (2007).
- Swanson, L. W. The projections of the ventral tegmental area and adjacent regions: a combined fluorescent retrograde tracer and immunofluorescence study in the rat. Brain Res. Bull. 9, 321-353 (1982).
- Cacciapaglia, F., Wrightman, R. M., Careli, R. M. Rapid dopamine signaling differentially modulates distinct microcircuits within the nucleus accumbens during sucrose-directed behavior. J. Neurosci. 31, 13860-13869 (2011).
- Martinez-Hernandez, J., Lanuza, E., Martinez-Garcia, F. Selective dopaminergic lesions of the ventral tegmental area impair preference for sucrose but not for male sex pheromones in female mice. Eur. J. Neurosci. 24, 885-893 (2006).
- Bassareo, V., Di Chiara, G. Differential influence of associative and nonassociative learning mechanisms on the responsiveness of prefrontal and accumbal dopamine transmission to food stimuli in rats fed ad libitum. J. Neurosci. 17, 851-861 (1997).
- Bassareo, V., Di Chiara, G. Differential responsiveness of dopamine transmission to food-stimuli in nucleus accumbens shell/core compartments. Neurosci. 89, 637-641 (1999).
- Cheng, J., Feenstra, M. G. Individual differences in dopamine efflux in nucleus accumbens shell and core during instrumental conditioning. Learn. Mem. 13, 168-177 (2006).
- Genn, R. F., Ahn, S., Phillips, A. G. Attenuated dopamine efflux in the rat nucleus accumbens during successive negative contrast. Behav. Neurosci. 118, 869-873 (2004).
- Hajnal, A., Norgren, R. Accumbens dopamine mechanisms in sucrose intake. Brain Res. 904, 76-84 (2001).
- Hajnal, A., Smith, G. P., Norgren, R. Oral sucrose stimulation increases accumbens dopamine in the rat. Am. J. Physiol. 286, R31-R37 (2003).
- Bassareo, V., Di Chiara, G. Modulation of feeding-induced activation of mesolimbic dopamine transmission by appetitive stimuli and its relation to motivational state. Eur. J. Neurosci. 11, 4389-4397 (1999).
- Hajnal, A., Lenard, L. Feeding-related dopamine in the amygdala of freely moving rats. Neuroreport. 8, 2817-2820 (1997).
- Bassareo, V., De Luca, M. A., Di Chiara, G. Differential expression of motivational stimulus properties by dopamine in nucleus accumbens shell versus core and prefrontal cortex. J. Neurosci. 22, 4709-4719 (2002).
- Feenstra, M., Botterblom, M. Rapid sampling of extracellular dopamine in the rat prefrontal cortex during food consumption, handling, and exposure to novelty. Brain Res. 742, 17-24 (1996).
- Hernandez, L., Hoebel, B. G. Feeding can enhance dopamine turnover in the prefrontal cortex. Brain Res. Bull. 25, 975-979 (1990).
- Liang, N. C., Hajnal, A., Norgren, R. Sham feeding corn oil increases accumbens dopamine in the rat. Am. J. Physiol. Regul. Integr. Comp. Physiol. 291, R1236-R1239 (2006).
- Dunnett, S. B., Iversen, S. D. Regulatory impairments following selective kainic acid lesions of the neostriatum. Behav. Brain Res. 1, 497-506 (1980).
- Salamone, J. D., Zigmond, M. J., Stricker, E. M. Characterization of the impaired feeding behavior in rats given haloperidol or dopamine-depleting brain lesions. Neurosci. 39, 17-24 (1990).
- Kelley, A. E. Ventral striatal control of appetitive motivation: role in ingestive behavior and reward-related learning. Neurosci. Biobehav. Rev. 27, 765-776 (2004).
- Kelley, A. E. Memory and addiction: shared neural circuitry and molecular mechanisms. Neuron. 44, 161-179 (2004).
- Kelley, A. E., Baldo, B. A., Pratt, W. E. A proposed hypothalamic-thalamic-striatal axis for the integration of energy balance, arousal and food reward. J. Comp. Neurol. 493, 72-85 (2005).
- Kelley, A. E., Baldo, B. A., Pratt, W. E., Will, M. J. Corticostriatal-hypothalamic circuitry and food motivation: integration of energy, action and reward. Physiol. Behav. 86, 773-795 (2005).
- Berendse, H. W., Galis-de-Graaf, Y., Groenewegen, H. J. Topographical organization and relationship with ventral striatal compartments of prefrontal corticostriatal projections in the rat. J. Comp. Neurol. 316, 314-347 (1992).
- Brog, J. S., Salyapongse, A., Deutch, A. Y., Zahm, D. S. The patterns of afferent innervation of the core and shell in the "accumbens" part of rat ventral striatum: immunohistochemical detection of retrogradely transported fluoro-gold. J. Comp. Neurol. 338, 255-278 (1993).
- McDonald, A. J. Organization of amygdaloid projections to the prefrontal cortex and associated stritum in the rat. Neurosci. 44, 1-14 (1991).
- McGeorge, A. J., Faull, R. L. The organization of the projection from the cerebral cortex to the striatum in the rat. Neurosci. 29, 503-537 (1989).
- Sesack, S. R., Deutch, A. Y., Roth, R. H., Bunney, B. S. Topographical organization of the efferent projections of the medial prefrontal cortex in the rat: an anterograde tract-tracing study with Phaseolus vulgaris leucoagglutinin. J. Comp. Neurol. 290, 213-242 (1989).
- Wright, C. I., Beijer, A. V., Groenewegen, H. J. Basal amygdaloid complex afferents to the rat nucleus accumbens are compartmentally organized. J. Neurosci. 16, 1877-1893 (1996).
- Wright, C. I., Groenewegen, H. J. Patterns of convergence and segregation in the medial nucleus accumbens of the rat: relationships of prefrontal cortical, midline thalamic and basal amygdaloid afferents. J. Comp. Neurol. 361, 383-403 (1995).
- Geary, N., Smith, G. P. Pimozide decreases the positive reinforcing effect of sham fed sucrose in the rat. Pharmacol. Biochem. Behav. 22, 787-790 (1985).
- Muscat, R., Willner, P. Effects of selective dopamine receptor antagonists on sucrose consumption and preference. Psychopharmacol. 99, 98-102 (1989).
- Schneider, L. H., Gibbs, J., Smith, G. P. D-2 selective receptor antagonists suppress sucrose sham feeding in the rat. Brain Res. Bull. 17, 605-611 (1986).
- Baker, R. W., Osman, J., Bodnar, R. J. Differential actions of dopamine receptor antagonism in rats upon food intake elicited by mercaptoacetate or exposure to a palatable high-fat diet. Pharmacol. Biochem. Behav. 69, 201-208 (2001).
- Rao, R. E., Wojnicki, F. H., Coupland, J., Ghosh, S., Corwin, R. L. Baclofen, raclopride and naltrexone differentially reduce solid fat emulsion intake under limited access conditions. Pharmacol. Biochem. Behav. 89, 581-590 (2008).
- Weatherford, S. C., Smith, G. P., Melville, L. D. D-1 and D-2 receptor antagonists decrease corn oil sham feeding in rats. Physiol. Behav. 44, 569-572 (1988).
- Azzara, A. V., Bodnar, R. J., Delamater, A. R., Sclafani, A. D1 but not D2 dopamine receptor antagonism blocks the acquisition of a flavor preference conditioned by intragastric carbohydrate infusions. Pharmacol. Biochem. Behav. 68, 709-720 (2001).
- Baker, R. M., Shah, M. J., Sclafani, A., Bodnar, R. J. Dopamine D1 and D2 antagonists reduce the acquisition and expression of flavor-preferences conditioned by fructose in rats. Pharmacol. Biochem. Behav. 75, 55-65 (2003).
- Dela Cruz, J. A., Coke, T., Icaza-Cukali, D., Khalifa, N., Bodnar, R. J. Roles of NMDA and dopamine D1 and D2 receptors in the acquisition and expression of flavor preferences conditioned by oral glucose in rats. Neurobiol. Learn. Mem. 114, 223-230 (2014).
- Dela Cruz, J. A., et al. Roles of dopamine D1 and D2 receptors in the acquisition and expression of fat-conditioned flavor preferences in rats. Neurobiol. Learn. Mem. 97, 332-337 (2012).
- Yu, W. Z., Silva, R. M., Sclafani, A., Delamater, A. R., Bodnar, R. J. Pharmacology of flavor preference conditioning in sham-feeding rats: effects of dopamine receptor antagonists. Pharmacol. Biochem. Behav. 65, 635-647 (2000).
- Yu, W. Z., Silva, R. M., Sclafani, A., Delamater, A. R., Bodnar, R. J. Role of D(1) and D(2) dopamine receptors in the acquisition and expression of flavor-preference conditioning in sham-feeding rats. Pharmacol. Biochem. Behav. 67 (1), 537-544 (2000).
- Touzani, K., Bodnar, R. J., Sclafani, A. Activation of dopamine D1-like receptors in nucleus accumbens is critical for the acquisition, but not the expression, of nutrient-conditioned flavor preferences in rats. Eur. J. Neurosci. 27, 1525-1533 (2008).
- Touzani, K., Bodnar, R. J., Sclafani, A. Dopamine D1-like receptor antagonism in amygdala impairs the acquisition of glucose-conditioned flavor preference in rats. Eur. J. Neurosci. 30, 289-298 (2009).
- Touzani, K., Bodnar, R. J., Sclafani, A. Acquisition of glucose-conditioned flavor preference requires the activation of dopamine D1-like receptors within the medial prefrontal cortex in rats. Neurobiol. Learn. Mem. 94, 214-219 (2010).
- Malkusz, D. C., et al. Dopamine signaling in the medial prefrontal cortex and amygdala is required for the acquisition of fructose-conditioned flavor preferences in rats. Behav. Brain Res. 233, 500-507 (2012).
- Bernal, S. Y., et al. Role of dopamine D1 and D2 receptors in the nucleus accumbens shell on the acquisition and expression of fructose-conditioned flavor-flavor preferences in rats. Behav. Brain Res. 190, 59-66 (2008).
- Bernal, S. Y., et al. Role of amygdala dopamine D1 and D2 receptors in the acquisition and expression of fructose-conditioned flavor preferences in rats. Behav. Brain Res. 205, 183-190 (2009).
- Dragunow, M., Faull, R. The use of c-fos as a metabolic marker in neuronal pathway tracing. J. Neurosci. Methods. 29, 261-265 (1989).
- VanElzakker, M., Fevurly, R. D., Breindel, T., Spencer, R. L. Environmental novelty is associated with a selective increase in Fos expression in the output elements of the hippocampal formation and the perirhinal cortex. Learn. Mem. 15, 899-908 (2008).
- Norgren, R., Hajnal, A., Mungarndee, S. S. Gustatory reward and the nucleus accumbens. Physiol. Behav. 89, 531-535 (2006).
- Park, T. H., Carr, K. D. Neuroanatomical patterns of fos-like immunoreactivity induced by a palatable meal and meal-paired environment in saline- and naltrexone-treated rats. Brain Res. 805, 169-180 (1998).
- Zhao, X. L., Yan, J. Q., Chen, K., Yang, X. J., Li, J. R., Zhang, Y. Glutaminergic neurons expressing c-Fos in the brainstem and amygdala participate in signal transmission and integration of sweet taste. Nan.Fang Yi.Ke.Da.Xue.Xue.Bao. 31, 1138-1142 (2011).
- Mungarndee, S. S., Lundy, R. F., Norgren, R. Expression of Fos during sham sucrose intake in rats with central gustatory lesions. Am. J. Physiol. Regul. Integr. Comp. Physiol. 295, R751-R763 (2008).
- Otsubo, H., Kondoh, T., Shibata, M., Torii, K., Ueta, Y. Induction of Fos expression in the rat forebrain after intragastric administration of monosodium L-glutamate, glucose and NaCl. Neurosci. 196, 97-103 (2011).
- Yamamoto, T., Sako, N., Sakai, N., Iwafune, A. Gustatory and visceral inputs to the amygdala of the rat: conditioned taste aversion and induction of c-fos-like immunoreactivity. Neurosci. Lett. 226, 127-130 (1997).
- Mitra, A., Lenglos, C., Martin, J., Mbende, N., Gagne, A., Timofeeva, E. Sucrose modifies c-fos mRNA expression in the brain of rats maintained on feeding schedules. Neurosci. 192, 459-474 (2011).
- Pecoraro, N., Dallman, M. F. c-Fos after incentive shifts: expectancy, incredulity, and recovery. Behav. Neurosci. 119, 366-387 (2005).
- Hamlin, A. S., Blatchford, K. E., McNally, G. P. Renewal of an extinguished instrumental response: Neural correlates and the role of D1 dopamine receptors. Neurosci. 143, 25-38 (2006).
- Kerfoot, E. C., Agarwal, I., Lee, H. J., Holland, P. C. Control of appetitive and aversive taste-reactivity responses by an auditory conditioned stimulus in a devaluation task: A FOS and behavioral analysis. Learn. Mem. 14, 581-589 (2007).
- Zhang, M., Kelley, A. E. Enhanced intake of high-fat food following striatal mu-opioid stimulation: microinjection mapping and fos expression. Neurosci. 99, 267-277 (2000).
- Teegarden, S. L., Scott, A. N., Bale, T. L. Early life exposure to a high fat diet promotes long-term changes in dietary preferences and central reward signaling. Neurosci. 162, 924-932 (2009).
- Del Rio, D., et al. Involvement of the dorsomedial prefrontal cortex in high-fat food conditioning in adolescent mice. Behav. Brain Res. 283, 227-232 (2015).
- Knapska, E., Radwanska, K., Werka, T., Kaczmarek, L. Functional internal complexity of amygdala: focus on gene activity mapping after behavioral training and drugs of abuse. Physiol. Rev. 87, 1113-1173 (2007).
- Dela Cruz, J. A. D., et al. c-Fos induction in mesotelencephalic dopamine pathway projection targets and dorsal striatum following oral intake of sugars and fats in rats. Brain Res. Bull. 111, 9-19 (2015).
- Paxinos, G., Watson, C. The rat brain in stereotaxic coordinates. , Elsevier. (2006).
- Ranaldi, R., et al. The effects of VTA NMDA receptor antagonism on reward-related learning and associated c-fos expression in forebrain. Behav. Brain Res. 216, 424-432 (2011).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
