Des détails sont présentés sur la façon dont le cartographie QTL avec une carte génétique basée sur la séquence génomique complète peut être utilisé pour identifier un gène de résistance aux médicaments chez Toxoplasma gondii et comment cela peut être vérifié avec le système CRISPR / Cas9 qui modifie efficacement une cible génomique, dans ce cas le Gène de résistance aux médicaments.
Article de méthode
Mapping QTL et édition CRISPR / Cas9 pour identifier un gène de résistance aux médicaments
Dans cet article
Résumé
Résumé
Le savoir scientifique est intrinsèquement lié aux technologies et méthodes disponibles. Cet article présentera deux méthodes permettant l'identification et la vérification d'un gène de résistance aux médicaments dans le parasite d'Apicomplexan Toxoplasma gondii , la méthode de la cartographie quantitative des locus de traits (QTL) en utilisant une carte génétique à base de séquences de génome entier (WGS) et la méthode Des répétitions palindromiques courtes clivées périodiquement et sans palpage (CRISPR) / Cas9. L'approche de la cartographie QTL permet de tester s'il existe une corrélation entre une (des) région (s) génomique (s) et un phénotype. Deux ensembles de données sont nécessaires pour exécuter une analyse QTL, une carte génétique basée sur la descendance d'une croix recombinante et un phénotype quantifiable évalué dans chacune des progénitures de cette croix. Ces ensembles de données sont ensuite formatés pour être compatibles avec le logiciel R / qtl qui génère une analyse QTL pour identifier des loci significatifs corrélés avec le phénotype. Bien que cela puisse considérablement réduire la recherche wEn ce qui concerne les candidats possibles, les QTL couvrent des régions contenant un certain nombre de gènes à partir desquels le gène causal doit être identifié. L'obtention de WGS de la progéniture était critique pour identifier la mutation de la résistance aux médicaments causale au niveau du gène. Une fois identifié, la mutation candidate peut être vérifiée par la manipulation génétique de parasites sensibles aux médicaments. La méthode la plus facile et efficace pour modifier génétiquement T. gondii est le système CRISPR / Cas9. Ce système comprenait seulement 2 composants codés sur un seul plasmide, un ARN guide unique (gRNA) contenant une séquence de 20 pb complémentaire de la cible génomique et l'endonucléase Cas9 qui génère une rupture d'ADN double brin (DSB) à la cible, Dont la réparation permet l'insertion ou la suppression de séquences autour du site de rupture. Cet article fournit des protocoles détaillés pour utiliser les outils d'édition du génome basés sur CRISPR / Cas9 pour vérifier le gène responsable de la résistance au sinefungine et pour construire des parasites transgéniques.
Introduction
La gamme hôte détermine l'étendue de la prévalence d'un parasite. Certains parasites ont des exigences d'hôte très spécifiques qui limitent la zone à partir de laquelle ils se trouvent, d'autres sont des généralistes. Un tel généraliste est Toxoplasma gondii ( T. gondii) . Ce parasite se trouve dans le monde entier car il peut infecter tous les mammifères et beaucoup d'oiseaux. Les humains sont également sensibles et on estime qu'environ 1/3 de la population mondiale a été infectée. Heureusement, une réponse immunitaire robuste contrôle normalement la croissance du parasite, mais dans les situations où le système immunitaire est compromis, le parasite peut se détériorer et causer des maladies souvent encéphaliques. En outre, ce parasite peut causer des maladies congénitales si les femmes précédemment non infectées sont infectées pendant la grossesse car elles manquent de mémoire immunitaire pour limiter rapidement la propagation du parasite. En outre, il existe un fardeau de toxoplasmose oculaire qui peut entraîner une perte de vision 1 . Pour ces reasoNs T. gondii est devenu un centre d'étude, et en raison des nombreuses méthodes moléculaires développées pour son étude, un modèle pour les parasites Apicomplexan. Deux méthodes qui seront discutées ici sont le cartographage quantitatif de Locus de traçabilité (QTL) et l'édition de gènes Palindromic court (CRISPR) / Cas9 régulière à l'intersection clusterisée. La cartographie QTL et l'édition CRISPR / Cas9 sont, respectivement, des approches génétiques avancées et inversées qui ont été utilisées dans des études antérieures pour identifier et / ou caractériser les gènes de virulence de T. gondii . Ici, ces méthodes sont combinées pour identifier et confirmer la fonction d'un gène de résistance à la sinefungine (SNF r ), TgME49_290860 et ses orthologues (annoté comme SNR1 ) 2 .
Bien que T. gondii puisse infecter une grande variété d'hôtes intermédiaires, il doit traverser et infecter les cellules épithéliales intestinales d'un felid pour compléter le cycle de vie. Les chats sont les hôtes définitifs du parasite où le sDes étapes exotiques sont produites et une recombinaison génétique par méiose se produit. Pour mener une étude QTL, il faut créer une croix génétique, et dans le cas de Toxoplasma, cela signifie passer deux souches de parasites différentes qui diffèrent selon un trait phénotypique, les taches parentales, à travers un chat pour produire une descendance recombinante 3 . Avant d'être administrés aux chats, les souches parentales sont résistantes aux médicaments séparés pour permettre une identification plus efficace des recombinants par double choix de médicaments de la progéniture 4 . Trois médicaments ont été utilisés à T. gondii à cette fin; Fluorodéoxyribose (FUDR) pour lequel l'uracile phosphoribosyl transférase ( UPRT ) est le gène de résistance 5 , l'arabinoside d'adénosine (ARA) pour lequel l'adénosine kinase ( AK ) est le gène de résistance 6 et la sinefungine (SNF) pour laquelle le gène de résistance était inconnu 7 . Plusieurs croisements génétiques ont étéCréé pour T. gondii , mais seulement la descendance 24 de la croix ME49-FUDR r X VAND-SNF r ont été gènes en utilisant le séquençage du génome complet (WGS) 8 . Cela a ouvert la possibilité de cartographier et d'identifier le gène de résistance SNF en utilisant cette croix car le parent VAND a été rendu résistant à la sinefungine par mutagenèse chimique de la souche VAND (VAND-SNF s ) sensible au médicament et le génome de référence VAND a été séquencé en utilisant le VAND- La souche de SNF permettant ainsi l'identification de tous les polymorphismes entre la progéniture WGS et le génome de référence de VAND-SNF, y compris la mutation VAND-SNF r parentale héréditaire qui a rendu une partie de la progéniture résistante à la sinefungine.
Afin d'identifier le polynucléaire causal de nucléotide unique (SNP) dans la descendance SNF r , plusieurs ressources open source à base de calcul peuvent être utilisées pour analyser les données. Pour créer la carte génétique pour le ME49-FUDR r X VAND-SNF r travers la suite de logiciel REDHORSE 9 a été développé qui utilise les alignements WGS des parents et des descendants pour détecter avec précision les positions génomiques des croisements génétiques. Cette information de cartographie peut ensuite être combinée avec les données phénotypiques (SNF r dans la progéniture) pour formater un ensemble de données compatible avec le paquet 'qtl' 10 dans le logiciel de programmation statistique R où un balayage QTL peut être exécuté pour révéler des loci significatifs corrélés avec Phénotype. Pour identifier le SNP causal situé dans le locus QTL, les lectures WGS de la progéniture peuvent être alignées individuellement avec le génome VAND sensible à la sinefungine en utilisant le programme d'alignement Bowtie 2 11 dont les SNP peuvent être appelés en utilisant le programme d'appelant variant VarScan mpileup2snp 12 . En utilisant ces SNP, le locus QTL peut ensuite être analysé pour les polymorphismes présents dans le SNF r mais pasDans la descendance SNF s . Avec le SNP causal identifié dans la région codante d'un gène, la modification génétique du gène candidat SNF r peut être effectuée dans une souche SNF pour vérifier la fonction de résistance aux médicaments.
Le système de modification du génome CRISPR / Cas9 a récemment été créé dans Toxoplasma 13 , qui a ajouté d'importants outils pour l'exploration de la biologie complexe de ce parasite, en particulier pour les études génétiques dans des souches non adaptées au laboratoire. En raison de l'activité hautement active de liaison non homologue (NHEJ) dans les cellules WT Toxoplasma , la modification ciblée du génome est difficile à réaliser car l'ADN introduit de manière exogène est intégré de manière aléatoire au génome à une fréquence extrêmement élevée 14 . Pour augmenter le taux de réussite de la modification spécifique du locus, différentes approches ont été utilisées pour augmenter l'efficacité de la recombinaison homologue et / ou diminuerE activité NHEJ 15 , 16 . L'une de ces approches est le système CRISPR / Cas9. Par rapport à d'autres méthodes, le système CRISPR / Cas9 est efficace pour introduire des modifications spécifiques au site et est facile à concevoir 13 , 17 , 18 . En outre, il peut être utilisé dans n'importe quelle souche Toxoplasma sans modification supplémentaire du parasite 13 , 19 .
Le système CRISPR / Cas9 provient du système immunitaire adaptatif de Streptococcus pyogenes qui l'utilise pour défendre l'invasion d'éléments génétiques mobiles tels que les phages 20 , 21 , 22 . Ce système utilise l'enzyme d'endonucléase d'ADN guidée par l'ARN Cas9 pour introduire une rupture d'ADN à double brin (DSB) dans la cible, qui est par la suite réparéeEmmenés soit par le NHEJ propice aux erreurs pour inactiver les gènes cibles à travers de courtes mutations d'indel, soit par recombinaison dirigée par homologie pour modifier le locus cible exactement comme conçu 23 , 24 . La spécificité cible est déterminée par une petite molécule d'ARN appelée RNA à guide unique (gRNA), qui contient une séquence de 20 nt conçue individuellement qui a 100% d'homologie avec l'ADN cible 22 . La molécule de gRNA contient également des signatures reconnues par Cas9 qui guident la nuclease vers le site cible, qui comprend un Motif adjacent Protospacer Adjacent (PAM, séquence 'NGG') 25 , 26 . Par conséquent, la molécule d'ARNp et la séquence PAM fonctionnent ensemble pour déterminer le site de clivage Cas9 dans le génome. On peut facilement changer la séquence de gRNA pour cibler différents sites pour le clivage.
Lorsque le système CRISPR / Cas9 a d'abord été développé dans ToxopLasma, un plasmide unique exprimant la nucléase Cas9 et la molécule d'ARNp a été utilisé pour introduire DSB au site de ciblage 13 , 17 . Il a été démontré que le système CRISPR / Cas9 augmente considérablement l'efficacité de la modification du génome spécifique au site, non seulement par recombinaison homologue, mais aussi par intégration non homologue de l'ADN exogène 13 . Il le fait dans des souches de type sauvage qui contiennent de l'activité NHEJ. Par conséquent, ce système peut être utilisé dans essentiellement n'importe quelle souche Toxoplasma pour l'édition efficace du génome. Dans une expérience typique, le plasmide CRISPR cible spécifique et le fragment d'ADN utilisé pour modifier la cible sont co-transfectés en parasites. Si le fragment d'ADN utilisé pour modifier la cible contient des séquences homologues sur le locus cible, une recombinaison homologue peut être utilisée pour réparer le DSB introduit par CRISPR / Cas9 pour permettre une modification précise de la cible. D'autre part, si l'intLe fragment d'ADN irradié ne contient pas de séquence homologue, il peut encore être intégré dans le site de ciblage CRISPR / Cas9. Ce dernier est souvent utilisé pour perturber les gènes par l'insertion de marqueurs sélectionnables ou pour compléter les mutants chez les loci qui permettent une sélection négative 13 . Ici, le locus SNR1 sert d'exemple pour montrer comment CRISPR / Cas9 peut être utilisé pour la perturbation des gènes et la génération de parasites transgéniques.
Protocole
1. Évaluez SNF r dans la progéniture de la ME49-FUDR r x VAND-SNF r Croix
NOTE: T. gondii est un parasite intracellulaire obligatoire et le stade tachyzoïte se développe facilement dans la culture tissulaire.
- Pour développer le parasite de T. gondii , maintenez-les dans une culture monocouche Fibroblaste de précompte humain (HFF) confluée ensemencée à des flacons T25 avec du milieu DMEM (Medium Eagle Eagle modifié) de Dulbecco additionné de 10% de sérum bovin fœtal (FBS) (milieu D10) à 37 ° C et 5% de CO 2 .
REMARQUE: voir le protocole 1.1 Note dans le document complémentaire 1 . - Pour tester les clones individuels de progéniture pour la résistance au sinefungine, faire pousser chaque clone à une forte densité parasitaire dans un flacon de culture HCR T25 pendant 2-3 jours, jusqu'à ce que la majorité des parasites commencent à lyser les cellules hôtes.
- Scraper la monocouche avec un grattoir cellulaire et passer la solution parasite par une seringue de 10 mL / 22 G aiguille franche 2-3x tLyser les cellules hôtes en libérant des parasites. La solution peut être retirée vers le haut dans la seringue pour plusieurs passages d'aiguille.
- Filtrer la solution parasitaire dans un nouveau tube conique à travers une membrane avec une taille de pores de 3 μm pour éliminer les cellules HFF et les débris cellulaires.
- Compter les parasites sur un hémocytomètre et déterminer le nombre de parasites par ml.
- En utilisant un pipetteur, passer 2,5 x 10 5 parasites à un nouveau flacon de culture TCR HFF contenant du milieu D10 avec une concentration de travail de 0,3 μM du médicament sinefungine.
- Cultiver les parasites à 37 ° C et 5% de CO 2 pendant 7-10 d.
- Noter la descendance du phénotype de croissance dans le médicament au sinefungine. Observez la monocouche sous un microscope à contraste de phase inversé et notez 0 pour aucune croissance (sensible à la sinefungine), score 1 pour la croissance et la lyse de la monocouche (résistant à la sinefungine).
REMARQUE: voir le protocole 1.8 Note dans le document complémentaire 1 .
2. RUne analyse QTL du phénotype SNF r en R / qtl
REMARQUE: voir la note du Protocole 2 dans le document complémentaire 1 .
- Installez le logiciel R du logiciel de programmation sur un ordinateur local. Voir 27 .
- Exécutez R et installez le paquet 'qtl'. Soit, faites-le de l'option d'interface R GUI 'Packages-> Installer le (s) paquet (s)', soit exécutez la commande suivante à partir de la ligne de commande R (le premier symbole ">" dans chaque exemple indique le début d'une commande, ne doit pas être Copié):
> Install.packages ("qtl")
REMARQUE: Une fois que R et le paquet 'qtl' ont été installés, il existe deux façons d'exécuter R / qtl, à partir de la ligne de commande R ou en utilisant un programme d'interface utilisateur graphique (GUI) appelé J / qtl 28 : voir 29 pour télécharger J / Qtl. Ce protocole fournira la syntaxe de la ligne de commande R / qtl avec une référence occasionnelle à la fonction équivalente dans J / qtl. - Chargez le paquet 'qtl':
> Bibliothèque (qtl)
REMARQUE: voir Protocole 2.3 Remarque dans le fichier complémentaire 1 pour le format de données et les téléchargements. - Chargez le fichier de jeu de données dans R / qtl.
- Pour le format "csv" (voir: Fichier de données 1):
> SNFR <- read.cross (format = "csv", file = "$ PATH / Rqtl-SNFR.csv", génotypes = c ("0", "1"), na.strings = c ("-") , ConvertXdata = FALSE) - Ou pour le format "gary" (voir: Fichier de données 2):
> SNFR <- read.cross (format = "gary", dir = "$ PATH", chridfile = "chrid.txt", mnamesfile = "mname.txt", mapfile = "markerpos.txt", genfile = "génotype". Txt ", phefile =" phenos.txt ", pnamesfile =" phenonames.txt ", convertXdata = FALSE)
Où $ PATH est le chemin du répertoire vers le (s) fichier (s) contenant le jeu de données qtl. Par exemple: / Users / HotDiggityDog / QTLfiles
REMARQUE: les fichiers peuvent également être chargésEd dans J / qtl avec les commandes précédentes en utilisant l'option "Insérer un commentaire ou une commande", ou charger les données avec l'option GUI 'Fichier-> Charger données croisées'.
- Pour le format "csv" (voir: Fichier de données 1):
- Calculez les probabilités pour la carte:
> SNFR <- calc.genoprob (SNFR, step = 2.0, off.end = 0.0, error.prob = 1.0E-4, map.function = "haldane", stepwidth = "fixed") - Exécutez une analyse unique en utilisant une distribution binaire du phénotype de résistance aux sinefungines dans tous les chromosomes:
> SNFR.scan <- scanone (cross = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa", "VIIb" "," VIII "," IX "," X "," XI "," XII "), pheno.col = c (1), model =" binary ", method =" em ")
REMARQUE: Si vous utilisez le phénotype VIR, utilisez l'option de distribution 'model = "normal"'. - Exécutez 1000 permutations pour calculer les seuils de signification et ensuite AttrIntroduire les permutations dans la variable SNFR.scan:
> SNFR.scan.permutations <- scanone (cross = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa" "VIIb", "VIII", "IX", "X", "XI", "XII"), pheno.col = c (1), model = "binary", method = "em", n.perm = 1000, perm.Xsp = FALSE, verbose = FALSE)
> Attr (SNFR.scan, "pheno.col") <- c (1)
REMARQUE: les étapes 2.5 à 2.7 peuvent être exécutées dans J / qtl avec l'option Analyse-> Numérisation principale>> Exécuter une option QTL Genome Scan '. - Parcourez les résultats de l'analyse:
> Parcelle (SNFR.scan, gap = 0, bandcol = "gray")
REMARQUE: L'intrigue produite en J / qtl est interactive.- Parcourez les résultats d'analyse pour seulement le chromosome IX, le chromosome avec le sommet le plus élevé:
> Tracé (SNFR.scan, chr = c ("IX"), gap = 0, bandcol = "gray", show.marker.names = TRUE)
- Parcourez les résultats d'analyse pour seulement le chromosome IX, le chromosome avec le sommet le plus élevé:
- Affiche toutes les positions des marqueurs et les scores LOD à partir de l'analyse unique:
> SNFR.scan - Montrer les résultats de seuil du test de permutation:
> Résumé (SNFR.scan.permutations) - Affichez uniquement les marqueurs supérieurs à la valeur de seuil alpha = .05 (prise de la sortie précédente):
> SNFR.scan [SNFR.scan $ lod> 2.68,] - Affichez les marqueurs avec le score LOD le plus élevé sur chaque chromosome:
> Résumé (SNFR.scan) - Affichez les marqueurs qui ont la valeur maximale de score LOD (prise de la sortie précédente):
> SNFR.scan [SNFR.scan $ lod> = 6.57,]
REMARQUE: voir le Protocole 2.13 Note dans le document complémentaire 1 .
3. Identifiez la mutation de SNF causale en utilisant WGS Read from the Progeny
REMARQUE: voir la note du protocole 3 dans le document complémentaire 1 .
- Alignez les lectures WGS de la progéniture individuelle au VAND sensible au sinefungine(VAND-SNF s ) génome parental.
REMARQUE: Téléchargez le génome de référence VAND (SNF s ) de l'assemblage NCBI AEYJ00000000.2 et le WGS lit (fichiers .sra) pour la progéniture 24 de NCBI SRA PRJNA258152. En outre, téléchargez les programmes suivants: Bowtie2 11 , NCBI SRA Toolkit, SAMtools 30 , VarScan 12 et MUMmer 31 .- Créez un index compatible Bowtie 2 à partir du fichier FASTA du génome de référence VAND à l'aide du programme bowtie2-build, désignant ici l'index "VAND":
> Bowtie2-build GCA_000224845.2_TGVAND_v2_genomic.fna VAND - Convertissez les fichiers WGS formatés SRA en fichiers FASTQ en utilisant fastq-dump avec l'option --split-files pour les lectures appariées (le fichier SRR1555372.sra pour la progéniture P1_14VB sera utilisé comme exemple):
> Fastq-dump --split-files SRR1555372.sra
REMARQUE: exécutez ceci et toutes les commandes suivantes dans le protocole 3.1 pour tous les 24progéniture. - Alignez les lectures WGS au génome de référence en utilisant bowtie2 avec sortie vers un fichier SAM (.sam) et l'option - end-to-end:
> Bowtie2 -x VAND -1 SRR155372_1.fastq -2 SRR1555372_2.fastq -S SRR155372.sam - end-to-end - Convertissez le fichier .sam en fichier BAM (.bam):
> Vue samtools -bS SRR155372.sam> SRR155372.bam - Trier le fichier .bam:
> Samtools trier SRR155372.bam SRR155372.sort - Index le fichier .bam trié:
> Indice samtools SRR155372.sort.bam
- Créez un index compatible Bowtie 2 à partir du fichier FASTA du génome de référence VAND à l'aide du programme bowtie2-build, désignant ici l'index "VAND":
- Appelez SNP pour la progéniture en utilisant VarScan
REMARQUE: voir le Protocole 3.2 Note dans le document complémentaire 1 .- Convertissez tous les fichiers indexés de BAM (.sort.bam) en un fichier formaté de pileup en utilisant samtools mpileup avec le fichier de référence du génome VAND, tous les fichiers .sort.bam de descendance et les résultats vers un fichier nommé AllProgeny-mpileup.txt:
> Samtools mpileup -f GCA_000224845.2_TGVAND_v2_genomic.fna SRR1555599.Sort.bam SRR1555372.sort.bam SRR1555660.sort.bam SRR1555672.sort.bam SRR1556052.sort.bam SRR1556122.sort.bam SRR1556192.sort.bam SRR1556194.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam. Sort.bam SRR1556202.sort.bam SRR1556203.sort.bam SRR1556274.sort.bam SRR1556276.sort.bam SRR1556278.sort.bam SRR1556395.sort.bam SRR1556396.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556397.sort.bam. Sort.bam SRR1556400.sort.bam SRR1556401.sort.bam SRR1556402.sort.bam> AllProgeny-mpileup.txt - Appelez tous les SNP à l'aide du programme VarScan mpileup2snp en utilisant le fichier AllProgeny-mpileup.txt, une couverture de lecture minimale de 5, une fréquence de variante minimale dans les lectures de .8, une valeur p de .01 et une sortie vers un nom de fichier AllProgeny-SNPs. SMS:
> Java -jar VarScan.jar mpileup2snp AllProgeny-mpileup.txt --min-coverage 5 --min-var-freq .8 --p-value .01> AllProgeny-SNPs.txt
REMARQUE: Le fichier AllProgeny-SNPs.txt est un fichier texte délimité par un onglet qui sera utilisé dans le Protocole 3.4 pour localiserLe SNP causal.
- Convertissez tous les fichiers indexés de BAM (.sort.bam) en un fichier formaté de pileup en utilisant samtools mpileup avec le fichier de référence du génome VAND, tous les fichiers .sort.bam de descendance et les résultats vers un fichier nommé AllProgeny-mpileup.txt:
- Trouvez les coordonnées du génome VAND qui correspondent aux coordonnées du locus QTL basé sur ME49
REMARQUE: voir protocole 3.3 Note dans le document complémentaire 1 .- Utilisez le programme NUMMER MUMmer pour aligner le génome ME49 (disponible pour téléchargement à partir de ToxoDB.org 32 ) et le fichier génome de référence VAND (la sortie va vers le fichier out.delta):
> Nucmer ToxoDB-28_TgondiiME49_Genome.fasta GCA_000224845.2_TGVAND_v2_genomic.fna - Utilisez le programme MUMmer show-coords pour obtenir les coordonnées des deux alignements du génome, sortie dans un fichier nommé ME49vsVAND-coords.txt:
> Show-coords out.delta> ME49vsVAND-coords.txt
REMARQUE: le fichier ME49vsVAND-coords.txt peut être utilisé pour trouver les contengs et les positions VAND qui correspondent au locus QTL; Les marqueurs MV359 à MV366 situés sur le chromosome IX ME49 entre 3 187 537 et 4 202 258 pb. Il y a deux contigs VAND qui couvrent le correspSur le locus QTL; KN044604.1: 657,441-1 pb et KN042501.1: 430,910-41,870 pb (les deux contigs alignent l'inverse vers le chromosome ME49).
- Utilisez le programme NUMMER MUMmer pour aligner le génome ME49 (disponible pour téléchargement à partir de ToxoDB.org 32 ) et le fichier génome de référence VAND (la sortie va vers le fichier out.delta):
- Évaluer les SNP de progéniture situés dans le locus QTL pour les SNP hérités uniquement dans la descendance SNF r
REMARQUE: voir le protocole 3.4 Note dans le document complémentaire 1 .- Examinez le fichier de données 3 pour identifier la mutation causale située dans le locus QTL. Numérisez les données pour un motif où la descendance SNF a un SNP et les SNF ne le font pas (faisable parce que les SNP de descendance ont été obtenus par rapport au génome de référence de VAND-SNF). Cela ne devrait se traduire par une seule position avec ce modèle, position 348130 sur VAND contig KN042501.1.
- Voir la ligne 6604 dans Data File 3 ( Figure 3 ).
REMARQUE: voir le Protocole 3.4.2 Note dans le document complémentaire 1 .
4. Vérification des résultats identifiés par CRISPR / Cas9-Inactivation génétique médiée.
REMARQUE: Pour confirmer le SNP causal identifié par la cartographie QTL et l'analyse WGS SNP, les modifications génétiques correspondantes doivent être effectuées dans un contexte WT SNF et le phénotype résultant examiné. Dans le cas de la résistance au sinefungine, la mutation responsable entraîne une inactivation du gène SNR1 par terminaison anticipée 2 . Par conséquent, une interruption de SNR1 peut être utilisée pour confirmation. Ici, un protocole détaillé est fourni pour utiliser les mutations indel induites CRISPR / Cas9 pour perturber SNR1 , pour démontrer son implication dans la résistance au sinefungine ( Figure 4 ).
- Construction spécifique du plasmide CRISPR SNR1
REMARQUE: voir le Protocole 4.1 Note dans le Fichier complémentaire 1 pour obtenir des plasmides et des cartes.- Obtenez la séquence génomique pour le gène cible ( SNR1 , TGME49_290860) de ToxoDB 32 .
- Utilisez des outils en ligne tels que E-CRISP 33 pour concevoir des gRNA spécifiques à la cible. N'incluez pas la séquence PAM (NGG) dans l'ARNg.
REMARQUE: voir le Protocole 4.1.2 Note dans le document complémentaire 1 . - Synthétisez les amorces pour construire le plasmide CRISPR spécifique cible.
- Selon la conception de l'étape 4.1.2, synthétiser deux amorces pour modifier l' UPRT ciblant le gRNA dans le plasmide CRISPR original à la séquence d'ARNm sélectionnée par mutagenèse dirigée.
NOTE: Les séquences de ces deux amorces sont les suivantes: gRNA-Fw: NNNNNNNNNNNNNNNNNNNNNGTTTTAGAGCTAGAAATAGC (N20 est la séquence d'ARNm cible spécifique) et gRNA-Rv: AACTTGACATCCCCATTTAC 2 .
- Selon la conception de l'étape 4.1.2, synthétiser deux amorces pour modifier l' UPRT ciblant le gRNA dans le plasmide CRISPR original à la séquence d'ARNm sélectionnée par mutagenèse dirigée.
- Effectuer les réactions de mutagenèse dirigées.
- En utilisant le UPRT ciblant le plasmide CRISPR (pSAG1 :: CAS9-U6 :: sgUPRT) en tant que modèle et les deux amorces énumérées ci-dessus, effectuez des réactions de mutagenèse dirigéesSelon les instructions du fabricant.
REMARQUE: utiliser les conditions de cyclage suivantes pour la PCR: 98 ° C pendant 1 min, suivie de 25 cycles de 98 ° C pendant 10 s, 55 ° C pendant 30 s et 72 ° C pendant 5 min, suivie d'une extension finale pendant 2 min À 72 ° C.
- En utilisant le UPRT ciblant le plasmide CRISPR (pSAG1 :: CAS9-U6 :: sgUPRT) en tant que modèle et les deux amorces énumérées ci-dessus, effectuez des réactions de mutagenèse dirigéesSelon les instructions du fabricant.
- Transformer les produits de mutagenèse contenant les plasmides CRISPR spécifiques de GOI aux cellules compétentes de E. coli par transformation chimique selon le protocole du fournisseur (voir Tableaux de matériaux ). Cultiver les transformants sur des plaques de lysogénie (LB) contenant de l'ampicilline (100 μg / mL) à 37 ° C. Ensuite, choisissez 2-4 clones et développez-les individuellement dans un milieu LB de 5 mL supplémenté avec 100 μg / mL d'ampicilline pendant 12-16 h.
- Extraire les plasmides des cultures en utilisant un kit d'isolement d'ADN et les analyser par électrophorèse sur gel d'ADN pour vérifier la taille des plasmides (la taille du plasmide attendue est de 9674 pb, utilisez le plasmide CRISPR original comme cOntrol). Utiliser l'amorce M13-Rev (5'-CAGGAAACAGCTATGACC) pour séquencer les plasmides pour confirmer la séquence spécifique de gRNA cible.
- Une fois que les clones positifs sont identifiés, stockez à la fois l'ADN plasmidique à -20 ° C et la culture bactérienne correspondante à -80 ° C pour une utilisation future.
NOTE: Le plasmide CRISPR à utiliser pour la transfection doit être dissous dans de l'eau désionisée et la concentration déterminée par spectrophotométrie ou une autre méthode.
- Une fois que les clones positifs sont identifiés, stockez à la fois l'ADN plasmidique à -20 ° C et la culture bactérienne correspondante à -80 ° C pour une utilisation future.
- Extraire les plasmides des cultures en utilisant un kit d'isolement d'ADN et les analyser par électrophorèse sur gel d'ADN pour vérifier la taille des plasmides (la taille du plasmide attendue est de 9674 pb, utilisez le plasmide CRISPR original comme cOntrol). Utiliser l'amorce M13-Rev (5'-CAGGAAACAGCTATGACC) pour séquencer les plasmides pour confirmer la séquence spécifique de gRNA cible.
- Transection par parasite.
NOTE: Des méthodes générales pour la culture de T. gondii dans des cellules HFF en milieu D10 ont été décrites précédemment 34 .- Deux à trois jours avant la transfection, ajouter suffisamment de parasites à un flacon T25 contenant une monocouche de cellules HFF confluentes (0,5-1 x 10 6 pour les souches de type 1, 1-2 x 10 6 pour d'autres souches) pour obtenir une cellule HFF de 70 à 80% Lyse dans les 2-3 jours.
- ExamiLa culture sous un microscope à contraste de phase inversée, lorsque la monocouche HFF est liée à 70-80% par les parasites. Retirez doucement le milieu avec une pipette et lavez les cellules de la surface du ballon avec 5 ml de tampon cytomix (KCl 120 mM, CaCl 2 0,15 mM, 10 mM K 2 HPO 4 / KH 2 PO 4 pH = 7,6, HEPES 25 mM, 2 MM d'EDTA, 5 mM de MgCl2, pH = 7,6). Par la suite, transférez la solution parasitaire à un tube conique de 15 ml.
REMARQUE: voir le Protocole 4.2.2 Note dans le document complémentaire 1 . - Passer la solution de parasite par une seringue de 10 ml / 22 G aiguille franche 2-3x.
- Filtrer la solution parasitaire dans un nouveau tube conique à travers une membrane avec une taille de pores de 3 μm pour éliminer les cellules HFF et les débris cellulaires.
- Pelleter les parasites filtrés par centrifugation à 400 xg pendant 10 min.
- Verser le surnageant et remettre en suspension les parasites granulés avec 10 ml de tampon cytomix, prendre une aliquote de 10 μL au detArmer la concentration parasitaire avec un hémocytomètre et granuler le reste par centrifugation à 400 xg pendant 10 min.
- Retirer le surnageant et remettre à nouveau le culot dans un tampon cytomix pour obtenir une densité de 4 x 10 7 parasites / ml.
- Dans une cuvette d'intervalle de 4 mm, mélanger 250 à 300 μL de solution parasitaire (1-1.3 x 10 7 parasites) avec 7,5 μg de plasmide CRISPR, 6 μL d'ATP (100mM) et 6 μL de glutathion (GSH) (250 mM).
- Electroporate les parasites 35 . Inclure une électroporation distincte comme un contrôle négatif dans lequel un plasmide CRISPR cible ailleurs, tel que l' UPRT ciblant le plasmide CRIPSR.
REMARQUE: les réglages de l'électroporation dépendent du périphérique. Pour l'électroporteur répertorié dans les Matériaux, utilisez les cuvettes d'intervalle de 4 mm. Le protocole suivant est recommandé: 1 700 V, 176 μs de longueur d'impulsion, 2 impulsions avec un intervalle de 100 ms.
- Déterminer la fréquence du résistien de la sinefungineAprès le ciblage CRISPR.
- Les cellules HFF de semence aux lamelles placées dans des plaques de 24 po 3-4 jours avant l'électroporation afin qu'elles soient confluées au moment de la transfection en 4.2.
- Essuyez les cellules HFF à partir d'un flacon T25 confluent et ajoutez ensuite 12 ml de milieu D10 et bien mélanger.
- Ajouter un lamelleau à chaque puits d'une plaque à 24 puits et une solution de cellule HFF de 500 μL à une aliquote à chaque puits. Incuber la plaque à 37 ° C pendant 3 4 d pour laisser crever les cellules jusqu'à confluent.
REMARQUE: Les cellules d'un flacon T25 suffisent à semer une plaque à 24 puits. - Ajouter 50 μl de solution de parasite électroporée à partir de l'étape 4.2.9 dans un puits de plaque de 24 puits contenant une lamelle ensemencée avec des cellules HFF confluentes. Transférer le reste de la solution parasitaire électroporée dans un flacon T25 ensemencé avec des cellules HFF confluentes.
- Évaluer l'efficacité de la transfection.
- Cultiver les cellules dans la plaque à 24 puits pendant 24 hEt ensuite réparer les cellules (cellules hôtes et parasites) avec 500 μl de formaldéhyde à 4% pour vérifier l'expression de Cas9-GFP par dosage immunofluorescent (IFA).
- Testez les cellules avec un anticorps anti-GFP et un anticorps spécifique Toxoplasma (tel que anti-TgALD) pour étiqueter les parasites totaux. Voir la feuille de produit d'anticorps pour la dilution recommandée (habituellement, 1: 1 000 est suffisant pour les IFA). Si les anticorps ne sont pas conjugués, utilisez deux anticorps secondaires différents conjugués avec des colorants fluorescents pour étiqueter les anticorps primaires.
- Observez les cellules étiquetées sur un microscope fluorescent avec des filtres appropriés pour les colorants fluorescents secondaires. Obtenir l'efficacité de la transfection en divisant le nombre de parasites positifs pour la GFP par le nombre de parasites totaux.
REMARQUE: Les deux anticorps utilisés pour l'IFA devraient provenir de deux espèces hôtes différentes, par exemple en utilisant la combinaison de anti-GFP de souris et anti-TgALD de lapin.
- Déterminez le fRésistance à la résistance au sinefungine chez les parasites transfectés.
- Pour les parasites transfectés cultivés dans des flacons T25, les cultiver pendant 2-3 jours jusqu'à la sortie naturelle. Ensuite, collecter les parasites, aiguiser les cellules souches de l'aiguille pour libérer les parasites intracellulaires et les purifier par filtration à travers des membranes avec une taille de pores de 3 μm. Comptez les parasites avec un hémocytomètre pour estimer la densité.
- Ajouter des parasites purifiés dans des plaques de 6 puits ensemencées avec des cellules HFF confluentes: pour la première rangée (3 puits), ajouter 200 parasites / puits et les cultiver en milieu D10 régulier (2 mL / puits); Pour la deuxième rangée, ajouter 5000 parasites / puits et les cultiver en milieu D10 contenant 0,3 μM de sinefungine.
- Mettez les plaques dans un incubateur à 5% de CO 2 et cultivez les parasites à 37 ° C 8-10 d sans perturbation pour permettre la formation des plaques. Fixez les échantillons avec 70% d'éthanol (2 ml / puits) et tachez la monocouche avec 0,1% de violette de cristal (2 ml / puits). Laver les puits avec de l'eau pour visualiserLes plaques (zones claires) formées par la croissance du parasite.
REMARQUE: le contrôle négatif doit être traité de la même manière côte à côte.
- Calculer le taux de résistance à la sinefungine induite par CRISPR.
- Obtenez le nombre moyen de plaques de puits contenant un médicament et calculez la viabilité du parasite comme X / 200. Obtenir le nombre moyen (Y) de plaques des puits contenant de la sinefungine pour calculer le taux de résistance au sinefungine induite par CRISPR comme suit:
Taux de résistance induite par CRISPR = 200 × Y / (5000 × X × efficacité de transfection)
NOTE: L'efficacité de la transfection est obtenue à partir de 4.3.2.
- Obtenez le nombre moyen de plaques de puits contenant un médicament et calculez la viabilité du parasite comme X / 200. Obtenir le nombre moyen (Y) de plaques des puits contenant de la sinefungine pour calculer le taux de résistance au sinefungine induite par CRISPR comme suit:
- Les cellules HFF de semence aux lamelles placées dans des plaques de 24 po 3-4 jours avant l'électroporation afin qu'elles soient confluées au moment de la transfection en 4.2.
- Examiner les mutations indel induites par CRISPR / Cas9
- Cultiver les parasites électroporés de la section 4.2.9 dans un flacon T25 ensemencé avec des cellules HFF pendant 2 jours à 37 ° C. Ensuite, remplacer le milieu par 5 mL de milieu D10 contenant 0,3 μM de sinefungine (milieu de sélection).
- Garder les parasites dans le milieu de sélection pendant au moins 3 passages jusqu'à ce que le bassin résistant devienne stable (indiqué par l'absence de croissance du parasite dans le groupe témoin négatif mais une forte croissance du parasite dans le groupe expérimental).
- Sous-clone le groupe résistant à la sinefungine pour obtenir des souches clonales.
- Recueillir des parasites fraîchement évités, purifier par filtrage par membrane de 3 μm et sous-clone dans des plaques à 96 puits ensemencées avec des cellules HFF confluentes dans un milieu D10 de 150 μL. Cultiver les cultures de sous-clonage dans un incubateur de CO 2 à 37 ° C pendant 7-10 jours sans perturber les plaques.
REMARQUE: voir le Protocole 4.4.2.1 Note dans le fichier 1 de la Communauté .
- Recueillir des parasites fraîchement évités, purifier par filtrage par membrane de 3 μm et sous-clone dans des plaques à 96 puits ensemencées avec des cellules HFF confluentes dans un milieu D10 de 150 μL. Cultiver les cultures de sous-clonage dans un incubateur de CO 2 à 37 ° C pendant 7-10 jours sans perturber les plaques.
- Vérifiez les plaques à 96 puits sous un microscope inversé à contraste de phase pour rechercher des puits qui ne contiennent qu'une seule plaque. Marquez de tels puits et transférez ensuite les cellules de chaque puits à des plaques de 24 puits ensemencées avec des cellules HFF à l'aide d'une pipette.
- Lorsque 80-90% des cellules HFF dans un puits sont lysées, récolter les parasites (environ 500 μL) et passer 50 μL de solution parasitaire à un nouveau puits pour maintenir la souche. Utiliser le reste (≈ 450 μL) pour extraire l'ADN génomique pour l'amplification par PCR.
- Pour l'isolement de l'ADN génomique du clone SNF r , granulez les parasites (de petites quantités de contamination des cellules HFF est tolérable) à 1000 xg pendant 10 min. Laver les parasites granulés avec une solution salée tamponnée au phosphate (PBS) une fois et les granuler à nouveau. Isoler l'ADN génomique à partir de cellules granulées en utilisant un kit commercial ou par ébullition. Resuspendre les parasites dans 50 à 100 μl de PBS.
REMARQUE: effectuer une PCR pour obtenir un fragment du gène SNR1 pour le séquençage. Utilisez les amorces suivantes pour amplifier le locus SNR1 2 : SNR1-Amp-Fw: 5 'CCGACCACAA CAATTTTC et SNR1-Amp-Rv: 5'GACGTGATTCACTTTTTTACAGACAGAC. Utiliser des ADN polymerases à haute fidélité. Amplifier le locus WT à des fins de contrôle.
- Pour l'isolement de l'ADN génomique du clone SNF r , granulez les parasites (de petites quantités de contamination des cellules HFF est tolérable) à 1000 xg pendant 10 min. Laver les parasites granulés avec une solution salée tamponnée au phosphate (PBS) une fois et les granuler à nouveau. Isoler l'ADN génomique à partir de cellules granulées en utilisant un kit commercial ou par ébullition. Resuspendre les parasites dans 50 à 100 μl de PBS.
- Exécuter tIl réagit avec 20 μL de volume de réaction et exécutez-le avec le programme suivant: 98 ° C pendant 1 min suivi de 30 cycles de 98 ° C pendant 10 s, 55 ° C pendant 30 s et 72 ° C pendant 2,5 minutes, suivi de Extension finale pendant 2 min à 72 ° C.
NOTE: Séquence des produits de PCR utilisant les amorces suivantes: SNR1-Seq1: 5 'GCC ACA TGC TTT AGC GTG, SNR1-Seq2: 5' TCC TCT CCA TCA CGG GTT GG, SNR1-Seq3: 5 'GCA AGA GCC GCG TGA CG , SNR1-Seq4: 5 'CTC TCC CGC GGT CGA G, SNR1-Seq5: 5' GCA CCG TCC GCA AGC et SNR1-Seq6: 5 'CCG GAA GGT GAA TCG TTC TTC. - Comparez les séquences du gène SNR1 des mutants résistants à la sinefungine à ceux de la souche WT en utilisant un outil d'alignement de séquence.
REMARQUE: voir le Protocole additionnel 2 du Fichier 2 pour des détails sur l'utilisation de la sélection négative au lieu de SNR1 pour la complémentation génétique ou la construction de contraintes transgéniques.
- Cultiver les parasites électroporés de la section 4.2.9 dans un flacon T25 ensemencé avec des cellules HFF pendant 2 jours à 37 ° C. Ensuite, remplacer le milieu par 5 mL de milieu D10 contenant 0,3 μM de sinefungine (milieu de sélection).
Résultats
Cet article décrit en détail plusieurs méthodes qui peuvent être utilisées successivement pour identifier un gène responsable de la résistance aux médicaments ( figure 1 ). La progéniture 24 de la croix M49-FUDR r X VAND-SNF a été évaluée en fonction de la résistance au médicament sinefungine comme décrit dans le Protocole 1. En utilisant la carte génétique et le phénotype SNF r de la descendance, une analyse QTL a été effectuée en R / Qtl - Protocole 2 ( Figure 2 ). Cela a entraîné un pic significatif sur le chromosome IX couvrant environ 1 Mbp. C'est dans cette région que se situe la mutation causale.
Pour identifier la mutation causale, les lectures WGS de la progéniture ont été alignées sur le génome de référence VAND-SNF s en utilisant Bowtie2 - Protocole 3.1, les SNP ont été appelés en utilisant VarScan mpileup2snp - Protocole 3.2 et le locus QTL dans le génome VAND a été identifié à l'aide de MUMmer - ProtocOl 3.3. Les SNP de progéniture dans le locus QTL ont été extraits et scannés pour un motif où la progéniture SNF a un SNP et les SNF ne le font pas, ce qui est possible car les SNP de descendance ont été obtenus par rapport au génome de référence de VAND-SNF ( Figure 3 ) . Un seul SNP correspondait à ce schéma qui aboutit à un codon d'arrêt précoce dans un gène putatif de transporteur d'aminoacides appelé SNR1 .
La confirmation que SNR1 est le gène de résistance SNF r a été effectuée en utilisant le système CRISPR / Cas9. Un nouveau plasmide CRISPR / Cas9 conçu pour l'édition de gènes de T. gondii a été réalisé contenant un gRNA ciblant le gène SNR1 près de la mutation SNF r identifiée dans la progéniture - Protocole 4 ( Figure 4A ). Le SNR1 ciblant le plasmide CRISPR / Cas9 a été électroporé dans une souche de parasite WT de SNF et des mutants résistants ont été obtenus lorsque le culteDans 0,3 μM de sinefungine. Aucun SNF r parasites n'a été obtenu lors de l'électroporation avec l'UPRT ciblant le plasmide CRISPR / Cas9. Plusieurs SNF r CRISPR mutants ont été clonés et la région autour de SNR1 gRNA cible a été séquencée. Chaque mutant avait un indel qui a perturbé la séquence codante du gène SNR1 ( figure 4B ). Cette méthode peut également être utilisée pour insérer une construction de ciblage dans le locus SNR1 via NHEJ ( Figure 5) ou par HR ( Figure 6 ) - Fichier supplémentaire 2 .
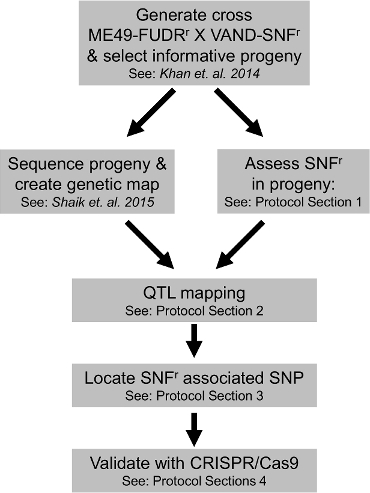
Figure 1: Flux de travail schématique pour les expériences décrites dans les protocoles. Les principales étapes de l'identification et de la confirmation du gène SNF r en utilisant la croix ME49-FUDR r X VAND-SNF r sont indiquées en référence aux protocoles appropriés décrits dans tSon article. Cliquez ici pour voir une version plus grande de ce chiffre.
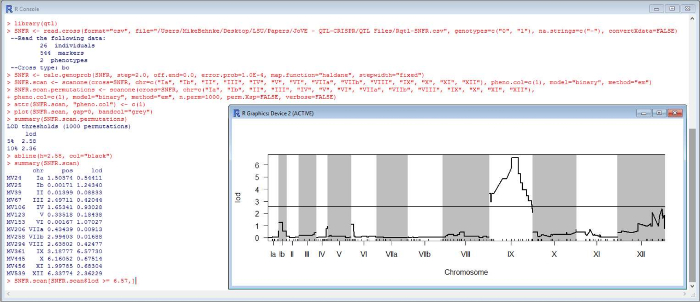
Figure 2: Commandes R / qtl pour exécuter QTL Scan sur le phénotype SNF r . Les commandes décrites dans le protocole 2 ont été exécutées dans R en utilisant le paquet qtl. Les commandes et l'intrigue représentatives sont affichées. Cliquez ici pour voir une version plus grande de ce chiffre.
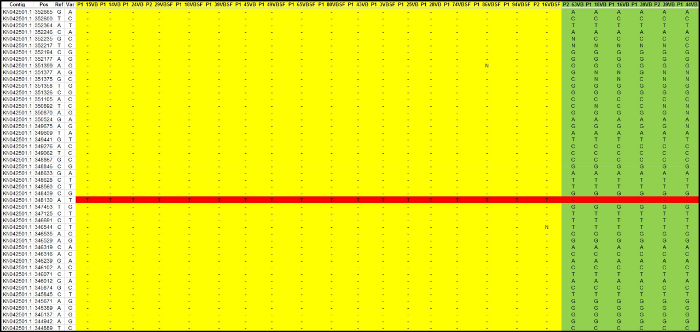
Figure 3: Emplacement du SNP causal. Progéniture Les lectures WGS ont été alignées sur le génome de référence de VAND-SNF avec Bowtie 2, les SNP ont été appelés avec VarScan et les correspondants VOG QTL locus identifié avec MUMmer. Les SNP situés dans le locus QTL ont été importés dans une feuille de calcul et le SNP causal a été identifié. Protéine SNF (jaune), descendance SNF (vert), SNF r SNP (rouge) (voir Fichier Data 3 ). Cliquez ici pour voir une version plus grande de ce chiffre.
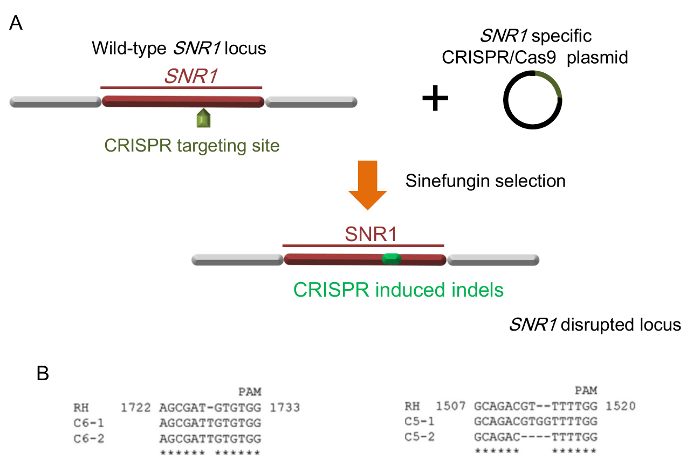
Figure 4: Confirmer SNR1 en tant que SNF r Gene en utilisant CRISPR / Cas9. ( A ) mutations d'indel induite par CRISPR / Cas9 (vert) dans le locus SNR1 . ( B ) Indels représentatifs dans SNR1 provoqués par deux plasmides CRISPR spécifiques SNR1 (C5 et C6 respectivement). RH est la souche WT et C5 et C6 sont des mutants SNF r . (B est pris de référenceS = "xref"> 2). Cliquez ici pour voir une version plus grande de ce chiffre.
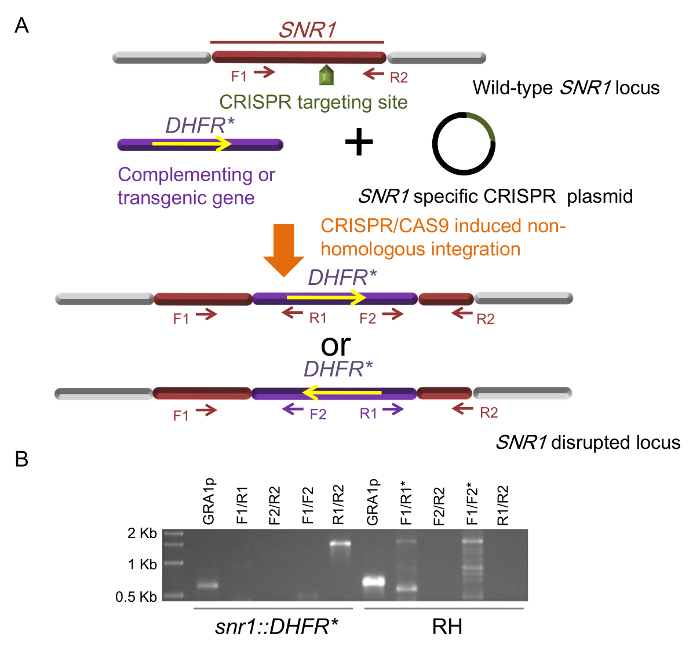
Figure 5. Mutagénèse Insertionnelle utilisant CRISPR / Cas9. ( A ) Insertion de gènes complémentaires ou transgéniques dans le locus SNR1 par intégration par site CRISPR / Cas9 médiée par site. Deux orientations possibles du mini-gène DHFR * inséré et les amorces utilisées pour l'identification, F1 / 2 et R1 / 2 représentent les sites d'amorçage des oligos utilisés dans les PCR diagnostiques. ( B ) Les PCR de diagnostic d'un clone snr1 :: DHFR * , RH est utilisé comme témoin WT. La PCR du GRA1p est incluse dans le contrôle de la qualité de l'ADN génomique en tant que modèle. Les astérisques indiquent des voies avec des bandes non spécifiques (la figure 5B est prise de référencerCe 2 ). Cliquez ici pour voir une version plus grande de ce chiffre.
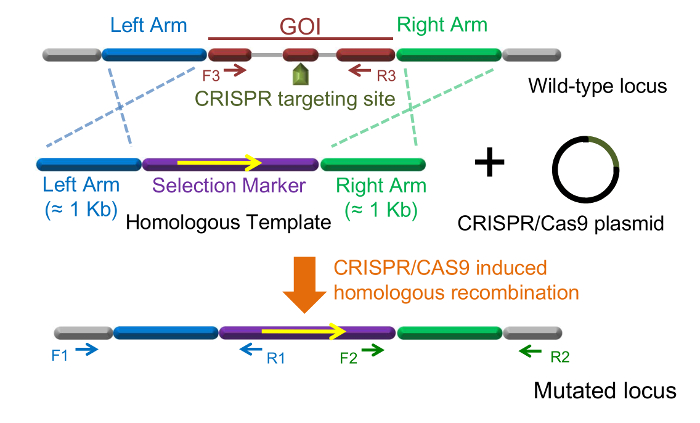
Figure 6: Knockout génétique utilisant CRISPR / Cas9. Un design classique pour le remplacement de gènes homologues médié par CRISPR / Cas9 chez T. gondii . L'orientation du transgène inséré est résolue dans ce cas. F1 / R1, F2 / R2 et F3 / R3 représentent les sites d'amorçage des oligos utilisés dans les PCR diagnostiques. Cliquez ici pour voir une version plus grande de ce chiffre.
Fichier de données 1: ME49-FUDR r X VAND-SNF r Fichier croisé fOu utiliser dans R / qtl, "csv" Format. Un fichier .csv qui peut être chargé dans R / qtl avec l'option format = "csv". Cliquez ici pour télécharger ce fichier.
Fichier de données 2: (chrid txt, génotype txt, markerpos.txt, mname.txt, phenonames.txt et phenos.txt). ME49-FUDR r X VAND-SNF r Fichiers croisés pour utilisation dans le format R / qtl, "gary". Six fichiers .txt qui peuvent être chargés en R / qtl avec l'option format = "gary". Cliquez ici pour télécharger ce fichier.
Fichier de données 3. Feuille de calcul avec SNP de progéniture à travers le SNF r QTL Locus. Contient une feuille de calcul avec les SNP de descendance et une deuxième feuille de travail avec les données phénotypiques des parents et la descendance de la croix. Cliquez ici pour télécharger ce fichier.
Fichier supplémentaire 1: Détails supplémentaires du protocole. Cliquez ici pour télécharger ce fichier.
Fichier supplémentaire 2: Protocole 5 - Utilisation de la sélection négative au site SNR1 pour la complétude génétique ou la construction de souches transgéniques. Cliquez ici pour télécharger ce fichier.
Discussion
Ces protocoles présentent plusieurs méthodes qui, lorsqu'elles sont combinées, permettent d'identifier un gène de résistance aux médicaments chez T. gondii . Deux en particulier étaient une partie intégrante du projet, la méthode relativement saisonnée de la cartographie QTL et la méthode récemment développée de l'édition de gènes CRISPR / Cas9. Lander et Botstein ont publié leur document influent en 1989 démontrant la cartographie QTL qui corrèle les loci génétiques avec les phénotypes 36 . Plus récemment en 2012, Dounda et Charpentier ont décrit le système d'édition CRISPR / Cas9 dans Streptococcus pyogenes 22 qui a été rapidement adapté comme outil génétique dans de nombreux modèles différents, y compris T. gondii 13 , 17 . Les deux méthodes étaient utiles ici, où la cartographie QTL définissait le locus contenant la mutation de la résistance aux médicaments qui a finalement été identifiée à l'aide de la détection SNP basée sur WGS, et l'édition CRISPR / Cas9 m'a fourni Et confirmer que SNR1 est le gène de résistance aux médicaments de sinefungine.
Le ME49-FUDR r X VAND-SNF r cross 8 a d'abord été développé pour interroger un phénotype de virulence 19 , mais les souches parentales ont également une différence phénotypique supplémentaire pour laquelle le gène causal n'était pas connu, la résistance au sinefungine chez le parent VAND. Cela met en évidence un avantage des croisements dans la mesure où ils peuvent être réorientés lorsque des différences phénotypiques supplémentaires chez les parents sont observées. C'est le cas pour une autre Toxoplasma cross, type 2 x type 3, où plusieurs gènes impliqués dans la virulence ont été trouvés en cartographiant de multiples phénotypes 37 , 38 , 39 , 40 . À ce jour, quatre croisements différents de T. gondii ont été décrits et utilisés pour cartographier les gènes responsables des phénotypesSs = "xref"> 8 , 37 , 41 , 42 , tous pouvant être réutilisés pour cartographier de nouveaux phénotypes pour lesquels la base génétique est inconnue. Dans ce sens, les génomes pour 62 souches de T. gondii représentant la diversité génétique mondiale connue ont été séquencés 43 . On pourrait créer de nouveaux croisements à partir de ce bassin pour les souches qui diffèrent selon les phénotypes intéressants. Après avoir exhorté les avantages de la cartographie QTL, il faut dire que générer une croix n'est pas une entreprise mineure. D'autres méthodes peuvent être utilisées pour identifier les gènes causaux. Une technique puissante utilise la mutagenèse chimique pour créer des mutants qui peuvent être criblés pour les phénotypes. Pour trouver le gène causal, les mutants peuvent soit être complétés avec des bibliothèques cosmiques 44, soit des méthodes de reséquencement du génome peuvent être utilisées pour trouver la mutation causale 45 . Pour le moisRe sur ceci, voir deux articles JoVE de Coleman et al. Et Walwyn et al. Qui décrivent ces approches 46 , 47 .
Beaucoup des étapes menant à l'identification de la mutation SNF causale (Protocoles 2 et 3) reposent sur des méthodes de calcul réalisées avec des logiciels disponibles gratuitement pour un usage académique. Des commandes détaillées pour chaque étape sont fournies et, lorsqu'elles sont exécutées avec les fichiers appropriés, permettront à l'utilisateur de recréer les jeux de données nécessaires pour trouver SNF causal SNP. Gardez à l'esprit qu'une partie de la syntaxe des commandes fait référence aux noms de fichiers ou à la structure du répertoire ($ PATH) qui peuvent être modifiés selon la préférence de l'utilisateur. Bien que les commandes données ici n'exécutent certainement pas les moyens d'analyser une croix avec l'analyse QTL et l'identification SNP basée sur WGS, elles sont suffisamment complètes pour répéter l'expérience décrite dans cet article et devraient permettre à l'utilisateur de devenir m Il est familier avec la façon dont ces approches sont utilisées de façon étape par étape.
Bien que la cartographie QTL et la détection SNP basée sur la séquence WGS soient suffisantes pour identifier un gène candidat SNF r , des expériences supplémentaires sont nécessaires pour confirmer son rôle dans la résistance aux médicaments. Cela peut être démontré de manière convaincante par des techniques de perturbation des gènes ou de knock-out, qui peuvent être réalisées à l'aide de l'édition de gènes CRISPR / Cas9. Des méthodes détaillées pour utiliser CRISPR / Cas9 pour générer des mutations indel ou insérer des constructions transgéniques dans un gène cible dans T. gondii sont données. La spécificité de ciblage que CRISPR / Cas9 fournit augmente l'efficacité de l'édition de gènes par rapport aux méthodes traditionnelles. En outre, cela a augmenté efficacement, a permis d'utiliser des souches non adaptées au laboratoire pour des études génétiques qui étaient auparavant difficiles à modifier 13 . Bien que dans son enfance, CRISPR / Cas9 ait déjà été utilisé pour provoquer des perturbations génétiquesLass = "xref"> 2 , 13 , 17 , 18 , 48 , 49 , marquez les gènes 17 , et créez les gènes nœuds 16 , 19 , 50 , 51 , 52 , 53 , 54 dans T. gondii , promettant d'être un outil utile Pour de nombreuses autres études à l'avenir.
La découverte que l'inactivation de SNR1 entraîne une résistance au sinefungine rend le locus SNR1 un site prometteur pour l'insertion de transgène ou la complémentation génétique. Pour maximiser le succès de l'utilisation du ciblage génétique médié par CRISPR / Cas9 pour diriger l'intégration du transgène dans le locus SNR1 , les aspects suivants devraient être considérésRouge lors de la conception expérimentale. Tout d'abord, un marqueur de sélection est recommandé d'être inclus dans la construction transgénique pour augmenter l'efficacité de la construction des contraintes. Si un marqueur de sélection est inclus, on peut utiliser une sélection positive et négative, ce qui donne à 100% des parasites doublement sélectionnés transgéniques avec le GOI intégré au locus SNR1 . En revanche, si la construction transgénique ne contient pas d'autres traits sélectionnables et repose sur une sélection négative au niveau du locus SNR1 , l'efficacité de la transgénèse réussie dépend en grande partie de l'efficacité de la co - transfection du plasmide CRISPR et de la construction transgénique.
Deuxièmement, bien que l'intégration spécifique au site médiée par CRISPR / Cas9 d'un fragment d'ADN non homologue soit fréquemment utilisée pour la complémentation et la transgenèse, il convient de noter que l'orientation de l'insertion ne peut être garantie dans les cas où l'une ou l'autre direction est possible. Cela peut poser problèmeMs à certaines applications. Par exemple, pour compléter un mutant avec des allèles de gènes différents, il est difficile de s'assurer que tous les allèles sont insérés dans la même orientation et que les divergences d'orientation peuvent entraîner des différences d'expression. Pour ce type d'application, des constructions d'ADN avec des séquences homologues au locus SNR1 sont recommandées, ce qui entraînera une orientation d'intégration appropriée ( Figure 6 ).
Troisièmement, pendant la transfection, le rapport entre le plasmide CRISPR et la molécule d'ADN transgénique est essentiel pour la construction de contraintes transgéniques réussies. Ce ratio doit être ajusté en fonction des stratégies de sélection. Les recommandations suivantes sont recommandées: 1) Si la construction transgénique contient un marqueur résistant aux médicaments et que le médicament correspondant est la seule sélection utilisée pour générer des parasites transgéniques, c'est-à - dire que la sinefungine n'est pas utilisée, le rapport molaire suggéré entre la construction transgénique et le plasmide CRISPRId est 1: 5. L'utilisation de plus de plasmide CRISPR dans ce cas augmente la probabilité que les parasites recevant la construction transgénique recevront également le plasmide CRISPR, donc les parasites résistant aux médicaments sont plus susceptibles d'avoir le marqueur inséré au site de ciblage CRISPR. Si le rapport est inversé, la plupart des parasites qui reçoivent la construction transgénique n'obtiendront pas le plasmide CRISPR. En conséquence, la grande majorité des parasites résistants aux médicaments obtiennent la construction transgénique par intégration aléatoire non associée à une insertion spécifique au site médiée par CRISPR / CAS9. 2) Si la construction transgénique contient un marqueur résistant aux médicaments et que le médicament correspondant est utilisé avec la sinefungine pour sélectionner des parasites transgéniques, le rapport molaire suggéré entre la construction transgénique et le plasmide CRISPR est de 1: 1. Cette stratégie offre la plus grande efficacité de la construction des contraintes transgéniques. 3) Si la construction transgénique ne contient pas de fabricant sélectionnable, en s'appuyant sur une sélection négativePar la sinefungin seule pour obtenir des parasites transgéniques, le rapport molaire suggéré entre la construction transgénique et le plasmide CRISPR est de 5: 1. La raison d'être de cette conception est la même que dans la première ligne directrice ci-dessus. Puisque la pyriméthamine et la sinefungine ont été utilisées pour la sélection dans le Protocole 5, le rapport entre le mini gène DHFR * et le plasmide CRISPR ciblant SNR1 a été fixé à 1: 1.
Ensemble, les méthodes décrites ici ont un niveau de détail qui n'a pas été possible de transmettre dans la publication originale qui a identifié SNR1 2 . Ces protocoles; En particulier, la syntaxe de la ligne de commande, la mise en page séquentielle des programmes utilisés et l'utilisation de CRISPR / Cas9 devraient aider les efforts futurs pour identifier les nouveaux gènes responsables des phénotypes.
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont pas d’intérêts financiers concurrents.
Remerciements
Nous tenons à remercier L. David Sibley et Asis Khan pour leur contribution à la publication originale sur laquelle ces protocoles sont basés. Ce travail a été financé par la subvention AL108721 des instituts nationaux de la santé.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Fioles T25 | Corning | 430639 | |
| Fibroblastes du prépuce humain (HFF) | ATCC | SCRC-1041 | |
| T. gondii ME49 souche | ATCC | 50840 | |
| T. gondiiVAND souche | ATCC | PRA-344 | |
| DMEM (sans bicarbonate de sodium) | Sciences de la vie | 12800017 | |
| Bicarbonate | de sodium Sigma Aldrich | S5761 | |
| HEPES | Sigma Aldrich | H3375 | |
| Sérum de veau fœtal (FBS) Premium Grade | VWR International | 97068-085 | |
| L-Glutamine ; 200 mM | Sigma Aldrich | G7513 | |
| Gentamicine (10 mg/mL) | Life Technologies ; | Racleur à | |
| cellules 15710064 pour flacons | VWR International | 10062-904 | |
| Seringue 10 mL | BD | 309604 | |
| Aiguilles émoussées 22 G x 1" | BRICO Products | BN2210 | |
| Filtre Nuclépore 3.0 µ ; m, 25 mm | GE Healthcare | 110612 | |
| Swin-Lok Porte-filtre 25 mm | GE Healthcare | 420200 | |
| Hemacytometer | Propper MFG | 90001 | |
| Sinefungin | Enzo Life Sciences | 380-070-M001 | |
| R ; | The R Foundation | https://www.r-project.org/ | |
| J/qtl | The Churchill Group | http://churchill.jax.org/software/jqtl.shtml | |
| Bowtie2 | Université John Hopkins | http://bowtie-bio.sourceforge.net/bowtie2/index.shtml | |
| NCBI SRA Toolkit | NCBI | http://www.ncbi.nlm.nih.gov/Traces/sra/?view=toolkit_doc | |
| SAMtools | Wellcome Trust Sanger Institute | http://www.htslib.org/ | |
| VarScan | Washington University, St Louis | http://varscan.sourceforge.net/ | |
| MUMmer | JCVI & Univ Hamburg | http://mummer.sourceforge.net/ | |
| pSAG1 ::CAS9-U6 ::sgUPRT | Addgene Plasmid #54467 | T. gondii Plasmide CRISPR pour couper le gène UPRT | |
| pSAG1 ::CAS9-U6 ::sg290860-6 | Addgene | Plasmide #59855 | T. gondii plasmide CRISPR pour couper le gène TG*_290860 SNR1 |
| pUPRT ::D HFR-D | Addgene | Plasmid #58528 | Modèle pour DHFR* mini gène |
| Q5 Kit de mutagenèse dirigée vers le site ; | New England Biolabs | E0552S | |
| QIAprep Spin Miniprep | Kit QIAGEN | 27106 | |
| NanoDrop 2000 | Thermo Scientific | ND-2000 | |
| LB Bouillon | Fisher Scientific | DF0446-07-5 | |
| Chlorure de potassium | Sigma Aldrich | P9541 | |
| Chlorure de calcium | Sigma Aldrich | 746495 | |
| Phosphate de potassium monobasique | Sigma Aldrich | P9791 | |
| Phosphate de potassium dibasique | Sigma Aldrich | P5504 | |
| EDTA | Sigma Aldrich | E5134 | |
| Chlorure de magnésium | Sigma Aldrich | M1028 | |
| Triposhpate d’adénosine (ATP) | Sigma Aldrich | A6419 | |
| L-glutathion (GSH) | Sigma Aldrich | G4251 | |
| ECM 830 Système d’électroporation | BTX | 45-0002 | |
| Cuvette d’électroporation 4 mm | Harvard Apparatus | 45-0126 | |
| Crytal Violet | Alfa Aesar | B21932-14 | |
| Plaque TC 6 puits | Corning | 353046 | |
| Plaque TC 24 puits | Corning | 353935 | |
| Verre de couverture rond de 12 mm | VWR International | 89015-724 | |
| Plaque TC à 96 puits | Corning | 353075 | |
| Gibson Assembly Cloning Kit (Multi-fragment) | New England Biolabs | E5510S | |
| Q5 Polymérase haute fidélité ; | New England Biolabs | M0491S | |
| Pyriméthamine | TCI AMERICA | P2037-1G | Utilisation de la cuation lors de l’utilisation de parasites résistants à la pyriméthamine - voir protocole |
Références
- Dubey, J. P. The history of Toxoplasma gondii--the first 100 years. J Eukaryot Microbiol. 55 (6), 467-475 (2008).
- Behnke, M. S., Khan, A., Sibley, L. D. Genetic Mapping Reveals that Sinefungin Resistance in Toxoplasma gondii Is Controlled by a Putative Amino Acid Transporter Locus That Can Be Used as a Negative Selectable Marker. Eukaryot Cell. 14 (2), 140-148 (2015).
- Dubey, J. P. History of the discovery of the life cycle of Toxoplasma gondii. Int J Parasitol. 39 (8), 877-882 (2009).
- Pfefferkorn, L. C., Pfefferkorn, E. R. Toxoplasma gondii: genetic recombination between drug resistant mutants. Exp Parasitol. 50 (3), 305-316 (1980).
- Donald, R. G., Roos, D. S. Insertional mutagenesis and marker rescue in a protozoan parasite: cloning of the uracil phosphoribosyltransferase locus from Toxoplasma gondii. Proc Natl Acad Sci U S A. 92 (12), 5749-5753 (1995).
- Sullivan, W. J. Jr Insertional tagging of at least two loci associated with resistance to adenine arabinoside in Toxoplasma gondii, and cloning of the adenosine kinase locus. Mol Biochem Parasitol. 103 (1), 1-14 (1999).
- Khan, A. Composite genome map and recombination parameters derived from three archetypal lineages of Toxoplasma gondii. Nucleic Acids Res. 33 (9), 2980-2992 (2005).
- Khan, A. NextGen sequencing reveals short double crossovers contribute disproportionately to genetic diversity in Toxoplasma gondii. BMC Genomics. 15 (1), 1168(2014).
- Shaik, J. S., Khan, A., Beverley, S. M., Sibley, L. REDHORSE-REcombination and Double crossover detection in Haploid Organisms using next-geneRation SEquencing data. BMC Genomics. 16 (1), 133(2015).
- Arends, D., Prins, P., Jansen, R. C., Broman, K. W. R/qtl: high-throughput multiple QTL mapping. Bioinformatics. 26 (23), 2990-2992 (2010).
- Langmead, B., Salzberg, S. L. Fast gapped-read alignment with Bowtie 2. Nat Methods. 9 (4), 357-359 (2012).
- Koboldt, D. C. VarScan 2: somatic mutation and copy number alteration discovery in cancer by exome sequencing. Genome Res. 22 (3), 568-576 (2012).
- Shen, B., Brown, K. M., Lee, T. D., Sibley, L. D. Efficient gene disruption in diverse strains of Toxoplasma gondii using CRISPR/CAS9. MBio. 5 (3), e01114(2014).
- Fox, B. A., Ristuccia, J. G., Gigley, J. P., Bzik, D. J. Efficient gene replacements in Toxoplasma gondii strains deficient for nonhomologous end joining. Eukaryot Cell. 8 (4), 520-529 (2009).
- Huynh, M. H., Carruthers, V. B. Tagging of endogenous genes in a Toxoplasma gondii strain lacking Ku80. Eukaryot Cell. 8 (4), 530-539 (2009).
- Wang, J. L. The Past, Present, and Future of Genetic Manipulation in Toxoplasma gondii. Trends Parasitol. , (2016).
- Sidik, S. M., Hackett, C. G., Tran, F., Westwood, N. J., Lourido, S. Efficient genome engineering of Toxoplasma gondii using CRISPR/Cas9. PLoS One. 9 (6), e100450(2014).
- Sugi, T., Kato, K., Weiss, L. M. An improved method for introducing site-directed point mutation into the Toxoplasma gondii genome using CRISPR/Cas9. Parasitol Int. , (2016).
- Behnke, M. S. Rhoptry Proteins ROP5 and ROP18 Are Major Murine Virulence Factors in Genetically Divergent South American Strains of Toxoplasma gondii. PLoS Genet. 11 (8), e1005434(2015).
- Barrangou, R. CRISPR provides acquired resistance against viruses in prokaryotes. Science. 315 (5819), 1709-1712 (2007).
- Garneau, J. E. The CRISPR/Cas bacterial immune system cleaves bacteriophage and plasmid DNA. Nature. 468, 67-71 (2010).
- Jinek, M. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Cong, L. Multiplex genome engineering using CRISPR/Cas systems. Science. 339 (6121), 819-823 (2013).
- Mali, P. RNA-guided human genome engineering via Cas9. Science. 339 (6121), 823-826 (2013).
- Jiang, F., Zhou, K., Ma, L., Gressel, S., Doudna, J. A. STRUCTURAL BIOLOGY. A Cas9-guide RNA complex preorganized for target DNA recognition. Science. 348 (6242), 1477-1481 (2015).
- Nishimasu, H. Crystal Structure of Staphylococcus aureus Cas9. Cell. 162 (5), 1113-1126 (2015).
- The R Project for Statistical Computing. , Available from: https://www.r-project.org (2016).
- Smith, R., Sheppard, K., DiPetrillo, K., Churchill, G. Quantitative trait locus analysis using J/qtl. Methods Mol Biol. 573, 175-188 (2009).
- The Churchill Group. , J/qtl. http://churchill.jax.org/software/jqtl.shtml (2013).
- Li, H. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25 (16), 2078-2079 (2009).
- Kurtz, S. Versatile and open software for comparing large genomes. Genome Biol. 5 (2), (2004).
- Gajria, B. ToxoDB: an integrated Toxoplasma gondii database resource. Nucleic Acids Res. 36 (Database issue), D553-D556 (2008).
- Heigwer, F., Kerr, G., Boutros, M. E-CRISP: fast CRISPR target site identification. Nat Methods. 11 (2), 122-123 (2014).
- Roos, D. S. Molecular genetic tools for the identification and analysis of drug targets in Toxoplasma gondii. Curr Top Microbiol Immunol. 219, 247-259 (1996).
- Soldati, D., Boothroyd, J. C. Transient transfection and expression in the obligate intracellular parasite Toxoplasma gondii. Science. 260 (5106), 349-352 (1993).
- Lander, E. S., Botstein, D. Mapping mendelian factors underlying quantitative traits using RFLP linkage maps. Genetics. 121 (1), 185-199 (1989).
- Saeij, J. P. Polymorphic secreted kinases are key virulence factors in toxoplasmosis. Science. 314 (5806), 1780-1783 (2006).
- Saeij, J. P. Toxoplasma co-opts host gene expression by injection of a polymorphic kinase homologue. Nature. 445 (7125), 324-327 (2007).
- Rosowski, E. E. Strain-specific activation of the NF-kappaB pathway by GRA15, a novel Toxoplasma gondii dense granule protein. J Exp Med. 208 (1), 195-212 (2011).
- Reese, M. L., Zeiner, G. M., Saeij, J. P., Boothroyd, J. C., Boyle, J. P. Polymorphic family of injected pseudokinases is paramount in Toxoplasma virulence. Proc Natl Acad Sci U S A. 108 (23), 9625-9630 (2011).
- Taylor, S. A secreted serine-threonine kinase determines virulence in the eukaryotic pathogen Toxoplasma gondii. Science. 314 (5806), 1776-1780 (2006).
- Behnke, M. S. Virulence differences in Toxoplasma mediated by amplification of a family of polymorphic pseudokinases. Proc Natl Acad Sci U S A. 108 (23), 9631-9636 (2011).
- Lorenzi, H. Local admixture of amplified and diversified secreted pathogenesis determinants shapes mosaic Toxoplasma gondii genomes. Nat Commun. 7, 10147(2016).
- Gubbels, M. J. Forward genetic analysis of the apicomplexan cell division cycle in Toxoplasma gondii. PLoS Pathog. 4 (2), e36(2008).
- Farrell, A. A DOC2 protein identified by mutational profiling is essential for apicomplexan parasite exocytosis. Science. 335 (6065), 218-221 (2012).
- Coleman, B. I., Gubbels, M. J. A genetic screen to isolate Toxoplasma gondii host-cell egress mutants. J Vis Exp. (60), (2012).
- Walwyn, O. Forward genetics screens using macrophages to identify Toxoplasma gondii genes important for resistance to IFN-gamma-dependent cell autonomous immunity. J Vis Exp. (97), (2015).
- Rugarabamu, G., Marq, J. B., Guerin, A., Lebrun, M., Soldati-Favre, D. Distinct contribution of Toxoplasma gondii rhomboid proteases 4 and 5 to micronemal protein protease 1 activity during invasion. Mol Microbiol. 97 (2), 244-262 (2015).
- Varberg, J. M., Padgett, L. R., Arrizabalaga, G., Sullivan, W. J. Jr TgATAT-Mediated alpha-Tubulin Acetylation Is Required for Division of the Protozoan Parasite Toxoplasma gondii. mSphere. 1 (1), (2016).
- Zheng, J., Jia, H., Zheng, Y. Knockout of leucine aminopeptidase in Toxoplasma gondii using CRISPR/Cas9. Int J Parasitol. 45 (2-3), 141-148 (2015).
- Long, S., Wang, Q., Sibley, L. D. Analysis of Noncanonical Calcium-Dependent Protein Kinases in Toxoplasma gondii by Targeted Gene Deletion Using CRISPR/Cas9. Infect Immun. 84 (5), 1262-1273 (2016).
- Wang, K. Identification of Novel O-Linked Glycosylated Toxoplasma Proteins by Vicia villosa Lectin Chromatography. PLoS One. 11 (3), e0150561(2016).
- Yang, M., Zheng, J., Jia, H., Song, M. Functional characterization of X-prolyl aminopeptidase from Toxoplasma gondii. Parasitology. , 1-7 (2016).
- Zhang, W. Analysis of the virulence determination mechanisms in a local Toxoplasma strain (T.gHB1) isolated from central China. Parasitol Res. , (2016).
Réimpressions et autorisations
