Nous présentons ici deux protocoles ultrarapides pour la reconstitution des protéines membranaires dans des protéoliposomes coniques et la fusion de ces protéoliposomes avec des bicouches lipidiques cible pour la livraison sans tensioactifs de ces protéines de membrane dans la bicouche traduisaient. La combinaison de ces approches permet un assemblage rapide et facile à contrôler des systèmes complexes membranaires multi-composants.
Article de méthode
Sans tensioactifs ultrarapide Reconstitution des protéines membranaires dans les bicouches lipidiques à l’aide de fusogène complémentaire chargée protéoliposomes.
Dans cet article
Résumé
Résumé
Détergents sont indispensables pour la livraison des protéines membranaires dans les vésicules unilamellaires petit de 30 à 100 nm, tandis que les bicouches lipidiques modèle plus complexe, plus grandes sont moins compatibles avec des détergents.
Nous décrivons ici une stratégie pour contourner cette limitation fondamentale à l’aide de fusogène opposées facturés liposomes portant une protéine de membrane d’intérêt. Fusion entre ces vésicules se produit moins de 5 min dans un tampon de faible force ionique. Liposomes chargés positivement fusogène peuvent servir de vecteurs navettes simple pour la livraison sans tensioactifs des protéines membranaires dans les bicouches lipidiques de biomimétique cible, qui portent une charge négative. Nous montrons aussi comment reconstituer les protéines membranaires dans des protéoliposomes coniques avec un protocole rapide 30 min.
Combinant ces deux approches, nous démontrons un montage rapide d’une chaîne de transport d’électrons, composée de deux protéines de membrane d’e. coli, un proton primaire pompe bo3-oxydase et F1Fo ATP synthase, dans les membranes des vésicules de tailles variées, allant de 0,1 à > 10 microns, ainsi que la production d’ATP par cette chaîne.
Introduction
Fonctionnalisation des bicouches lipidiques artificiel avec des protéines de la membrane est une étape clé dans l’assemblage de systèmes modèles de membrane. Le modèle le plus simple, protéoliposomes (PL), se compose de petites (30 à 200 nm de diamètre) vésicules unilamellaires (SUV, également appelés liposomes), avec des protéines intégrées dans leurs membranes. PL sont traditionnellement formés en deux étapes1. Tout d’abord, préformé SUV sont mélangés avec une protéine de membrane d’intérêt et un détergent à une concentration supérieure à la concentration micellaire critique (CMC). Deuxièmement, le détergent est supprimé avec différentes techniques de filtration dialyse, « bio-perles » ou gel, laissant la protéine dans la membrane. Cette dernière approche est beaucoup plus rapide (~ 30 min1) et est donc préférable pour la reconstitution des protéines membranaires fragiles et sensibles, tandis que les deux premières approches sont limitées par la vitesse d’enlèvement détergent, prend beaucoup d’heures et pouvant entraîner une perte substantielle de l’activité et la perte d’intégrité structurale des protéines. Fonctionnalisation de grandes vésicules (grosses vésicules unilamellaires, LUV, jusqu'à 1 µm de diamètre) de cette approche est plus difficile, comme la vésicule taille obtient réduite après le retrait de détergent, et il n’est pas possible pour les vésicules unilamellaires géant (GUV, > 1 µm), car ils sont déstabilisés par les détergents (mais voir Johnson et al. 2 pour 2D-cristallisation lente des protéines membranaires dans les bicouches grands). Les approches alternatives pour GUV membrane fonctionnalisation3,4,5 existent mais sont laborieux, beaucoup de temps et ont encore besoin de peu de détergent à des concentrations inférieures CMC. Plus fragiles ou complexe lipidique modèles (par exemple, les gouttelettes Hydrogel bicouches6 et les tissus artificiels axée sur le Droplet Interface double couche imprimable 3D7) ne peuvent tolérer des détergents. Émergent rapidement des applications de la biologie synthétique8,9,10 critique dépendent de fonctionnalisation de telles structures de complexes membranaires. Par conséquent, une méthode simple et robuste, ce qui permet une livraison rapide et en douce des protéines membranaires dans les bicouches fragile de la cible est très recherchée dans le domaine.
Alternative, la méthode de livraison de protéines sans tensioactifs est la fusion des vésicules, où les membranes des vésicules interaction s’unissent dans la bicouche traduisaient intacte, alors que leur contenu aqueux intravésiculaire se mêler, sans être rejeté dans l’externe environnement. La fusion des vésicules est activée et branchés conformationnelles réarrangements dans les agents fusogène complémentaires (certaines protéines11,12 et peptides13 ou l’ADN spécialement mis à jour le14) situés au contacter bicouches ou interaction coulombienne entre formée de lipides cationiques et anioniques complémentarité chargés15,16, des bicouches lipidiques ou bicouches cationiques et protéines chargées négativement17.
L’ancienne approche nécessite la présence d’agents fusogène dans les membranes interactions avant la fusion, est relativement lente (~ 30 minutes pour arriver à moitié-maximum de fusion12,18), mais peut être appliqué à la fois naturel et artificiel membranes.
Un avantage de l’approche à l’aide de fusogène lipides (Figure 1), c’est qu’il permet beaucoup fusion de membrane plus rapide (~ 1 min pour atteindre la demi-maximum et 5-10 min à la fin de la réaction). En outre, l’ampleur de la fusion peut être contrôlé par i) un facile à formuler le contenu relatif de lipides chargés dans les bicouches coniques et ii) ionique et, en générale, osmotique force du milieu réactionnel (sels à au-dessus de 50 mM et, par exemple, saccharose,15 sont indiqués pour arrêter la fusion), ou une combinaison des deux. Pour démarrer la fusion, les vésicules de charge opposée fusogène sont mélangés dans un milieu de force ionique faible (typiquement sel de 10-20 mM) pendant 5-10 min. Un désavantage relatif de la méthode est que les lipides cationiques peuvent exercer un effet négatif sur la fonctionnalité des protéines membranaires, cationiques protéoliposomes avant la fusion, en particulier à faible force ionique, mais cet effet est réversible et atténuée par un naturel composition lipidique de la membrane après fusion et son retour au milieu de force ionique normal.
Protocole
1. préparation des fusogène SUV et LUV
-
Préparation du mélange lipidique fusogène
- Préparer les solutions de lipides neutres, cationiques, anioniques et fluorescents dans le chloroforme à 25-50 mg/mL (par exemple, neutre DOPC (1,2-dioleoyl-sn-glycero-3-phosphocholine), cationique éthyl-PC (1,2- dimyristoleoyl-sn-glycéro-3-ethylphosphocholine), POPA anionique (1-palmitoyl-2-oleoyl-sn-glycero-3-phosphate) et fluorescent cholestéryle-Bodipy-FL12, respectivement) en pesant les quantités appropriées de lipides secs et les dissoudre dans 100 % chloroforme (attention ! Ce faire sous une hotte aspirante), ou diluer les stocks de chloroforme disponibles dans le commerce des lipides avec du chloroforme.
Remarque : Les lipides naturels extraits et pures lipides synthétiques peuvent être utilisés et démontrent des résultats similaires. - Un cationique de Mix 2. 5 mg et 2,5 mg de lipides neutres en stock de chloroforme (1.1.1) dans un flacon en verre.
Remarque : Cette étape donne 5 mg de mélange de lipide cationique dans le chloroforme, contenant la fraction de poids de 50 % des lipides cationiques. Si nécessaire, ajouter 0,5 % fraction de poids d’un lipide fluorescent au mélange. - Mélanger 1 mg d’anioniques et 4 mg de lipides neutres dans les stocks de chloroforme (1.1.1) dans un flacon en verre. Ce qui donne 5 mg de mélange de lipides anioniques contenant la fraction de poids de 20 % de lipides anioniques.
- Évaporer le chloroforme sous un courant d’azote pour former une fine couche de lipides sec.
- Retirez le chloroforme résiduel sous vide pendant 10 min.
NOTE : Traditionnellement, cette étape prend beaucoup plus longtemps (1-12 h), mais nous avons constaté qu’un traitement plus long ne fournit aucune amélioration évidente dans le couplage des propriétés des SUV. - Hydrater le film lipidique sec en ajoutant 0,5 mL de tampons A (100 mM KCl, 1 mM MgCl2, vadrouilles de 50 mM, pH 7,4) à chaque flacon et laisser reposer à température ambiante pendant 30 min et puis vortex jusqu'à ce que le film lipidique est complètement détaché de la surface du verre et b précèd une suspension homogène de lipides. Cela devrait prendre environ 20 à 40 s.
- Préparer les solutions de lipides neutres, cationiques, anioniques et fluorescents dans le chloroforme à 25-50 mg/mL (par exemple, neutre DOPC (1,2-dioleoyl-sn-glycero-3-phosphocholine), cationique éthyl-PC (1,2- dimyristoleoyl-sn-glycéro-3-ethylphosphocholine), POPA anionique (1-palmitoyl-2-oleoyl-sn-glycero-3-phosphate) et fluorescent cholestéryle-Bodipy-FL12, respectivement) en pesant les quantités appropriées de lipides secs et les dissoudre dans 100 % chloroforme (attention ! Ce faire sous une hotte aspirante), ou diluer les stocks de chloroforme disponibles dans le commerce des lipides avec du chloroforme.
-
Formation de SUV et LUV par extrusion
- Monter un système d’extrusion (voir la Table des matières) tailles de pores avec deux seringues de 1 mL en utilisant un filtre en polycarbonate avec une des valeurs suivantes : 100 ou 200 nm à votre SUV et 400 ou 800 nm à forme LUV.
- Transférer la suspension de lipides dans une seringue.
- Extruder la suspension en passant à travers le filtre 21 fois, comme le montre d’ailleurs18,19.
Remarque : Un nombre impair de passages est nécessaire pour minimiser le transfert dans la solution de vésicules de lipide grandes touffes collé à la face de filtre vers la suspension originale de lipides. - Transfert en solution de vésicule dans des tubes de microcentrifuge de 1,5 mL.
2. formation de fusogène GUV par méthode émulsion inversé
Remarque : Cette procédure est illustrée à la Figure 2.
-
Préparation de la solution de lipide-dans-huile
- Mélanger un stock de chloroforme (voir étape 1.1.1) d’un lipide neutre (2 mg) et d’un lipide anionique (0,5 mg) avec 1 mL d’hexadécane dans tube microtubes de 1,5 mL.
- Évaporer le chloroforme du mélange sous la constante mélanger et chauffer à 80 ° C pendant 30 min, maintenir le tube ouvert. Fermer le tube et laisser refroidir à température ambiante.
-
Formation d’une monocouche de lipides à l’interface lipide-dans-huile/aqueuse tampon
- Place 200 µL de la solution de lipides dans l’huile sur le dessus de 0,5 mL de tampon B (20 mM KCl, 0,1 mM MgCl2, 10 mM MOPS de pH 7,4) dans un tube à centrifuger 1,5 mL. Notez la forme convexe de la frontière de séparation de phase en raison de l’incompatibilité de la tension superficielle entre l’huile et le tampon aqueux (Figure 2 a).
- Attendre jusqu'à ce que la frontière de séparation de phase s’aplatit, qui témoigne de la formation de monocouches de lipide sur elle. Cela prend généralement de 30 à 60 min à température ambiante.
-
Préparation d’une émulsion eau-dans-huile
- Préparer une solution d’un polysaccharide soluble dans l’eau non ioniques dans un tampon B, avec une densité supérieure à la densité de l’eau (p. ex. 15 % Ficoll-400 (p/v), avec une densité 1,05 g/mL)
NOTE : On peut éventuellement ajouter des fluorochromes soluble dans l’eau à la mémoire tampon pour une meilleure visualisation de GUV et tout autre contenu aqueux souhaitée des GUVs. - Transférer 0,5 µL du mélange ci-dessus dans un tube à centrifuger de 1,5 mL séparé avec 100 µL de la solution de lipides dans l’huile de 2.1.2.
- Soniquer (44 kHz à 14 W) le mélange pendant 30 s dans un bain d’eau à ultrasons. Puis, vigoureusement vortex pendant 45 min former une émulsion eau-dans-huile, où chaque gouttelette sera enduite par une monocouche de lipides (Figure 2 b).
- Préparer une solution d’un polysaccharide soluble dans l’eau non ioniques dans un tampon B, avec une densité supérieure à la densité de l’eau (p. ex. 15 % Ficoll-400 (p/v), avec une densité 1,05 g/mL)
-
Filialisation de l’émulsion eau-dans-huile GUV
- Placer l’émulsion résultante sur l’interface lipide-dans-huile/aqueux et Centrifuger immédiatement le tube dans une centrifugeuse de table-top à 10 000 x g pendant 2 min. La pastille qui en résultent de GUV doit être clairement visible (Figure 2).
- Refroidir le tube à 4 ° C dans un réfrigérateur pour solidifier le mélange lipidique dans l’huile (Figure 2D, hexadécane solidifie au-dessous de 18 ° C), retirer délicatement la gelée de pétrole et ensuite retirer la phase aqueuse.
NOTE : Pour faciliter l’huile antigel enlèvement un fil plié en forme de point d’ancrage a été utilisé. - Resuspendre le culot GUV dans 50 µL de tampon de frais B, transfert vers un nouveau tube et l’examiner sous un microscope à fluorescence à l’aide d’un objectif à immersion d’huile X 100 (Figure 2E).
3. suivi de la Fusion des vésicules avec Cobalt-calcéine méthode
-
Préparation d’une colonne de gravité-filtration sur gel.
- Faire tremper environ 10 g de résine gel-filtration (p. ex. superfine sephadex G-50) dans 100 mL d’eau désionisée et laissez gonfler pendant la nuit.
- Paquet de 3 mL de la résine dans une colonne d’écoulement de gravité en plastique jetables, lavez-le avec de l’eau ultrapure et équilibrer avec tampon C (100 mM KCl, vadrouilles de 10 mM, pH 7,4) à température ambiante.
-
Préparation de SUV+ ou SUV0 truffé de cobalt-calcéine.
- Préparer une solution contenant calcéine 1 mM, 1 mM CoCl2, 98 mM NaCl, 10 mM MOPS, puis amener le pH à 7.4.
Remarque : L’essence de la méthode est que calcéine fluorescent libre forme un complexe de non fluorescent avec Co2 +. Il devient fluorescent à nouveau lors de l’addition d’EDTA, qui ayant une affinité plus élevée pour le Co2 +, déplace calcéine du complexe de cobalt-calcéine (Figure 3 a). - Ajouter 500 µL de cette solution à un film sec de lipides cationiques ou neutres préparé comme indiqué au point 1.1.
- Préparer 100 nm vus par extrusion comme décrit dans 1.2.
- Pellet extrudé SUV à 1 000 000 x g pendant 20 min dans une ultracentrifugeuse table-top et remettre en suspension dans 1 mL de tampon C. Granulation et la remise en suspension le répète trois fois ; utiliser 0,6 mL de tampon C pour la dernière remise en suspension.
Remarque : Ces étapes enlèvent la plupart de la cobalt-calcéine externe. - Supprimer le cobalt-calcéine externe restant en passant vus à travers une colonne d’écoulement par gravité jetables chargée avec la filtration sur gel résine équilibrée avec tampon C comme pour l’étape 3.1.2.
NOTE : Nous en général jeter le premier volume de millilitre de l’accréditif et recueillir le deuxième millilitre, qui contient cobalt-calcéine externe libre SUV.
- Préparer une solution contenant calcéine 1 mM, 1 mM CoCl2, 98 mM NaCl, 10 mM MOPS, puis amener le pH à 7.4.
-
Préparation des SUV– chargés avec de l’EDTA
- Préparer la solution de 10 mM EDTA, 80 mM NaCl, vadrouilles de 10 mM, pH 7,4.
- Ajouter 500 µL de cette solution à un film sec de lipides anioniques préparé comme indiqué au point 1.1.
- Préparer les SUV– par extrusion comme décrit dans 1.2.
- Pellet et resuspendre SUV– comme décrit dans 3.2.4.
- Supprimer l’EDTA restant en passant SUV– à travers la colonne de filtration sur gel tel que décrit en 3.2.5.
-
Préparation des SUV de fusion
- Diluer le SUV0, SUV+et SUV– avec le tampon D (MOPS de 1 mM, pH 7,4) additionné de 0,2 mM CoCl2 et la concentration désirée de KCl. utilisation 5 µL de chaque type de SUV pour 1 mL de tampon D.
- Incuber le mélange pendant au moins 1 h.
Remarque : Cette étape réduira le niveau de fluorescence de fond en bloquant calcéine est liée par surface à SUV+.
-
Fusion des vésicules
- Déclencher la réaction de fusion de mélanger 1 mL de SUV+ ou SUV0 avec 1 mL de SUV− (dilué dans un tampon D tel que décrit ci-dessus) dans une cuvette de 2 mL fluorimètre et moniteur augmentant la fluorescence de calcéine avec 480 nm excitation et 510 nm d’émission (Figure 3 b).
- Attendez que la réaction vient jusqu'à la fin.
- Ajouter un mélange de détergent Triton X-100 et EDTA (concentration finale de 0,05 % et de 7 mM, respectivement) de libérer calcéine de vésicules et d’obtenir le signal de fluorescence maximale.
- Déterminer le degré de fusion défini comme le pourcentage du signal de fluorescence maximale après l’addition de détergent comme le montre la Figure 3.
4. rapide Reconstitution des protéines membranaires dans des protéoliposomes coniques
Remarque : Cette procédure est illustrée dans la Figure 4 a.
- Préparer une colonne débit de gravité avec la résine filtration sur gel comme décrit au point 3.1 et il équilibrer avec tampons A température ambiante.
Remarque : Toutes les manipulations supplémentaires doivent être faites strictement à ≤ 4 ° C, sauf indication contraire, à réduire la perte de l’activité de la protéine. - Ajuster la concentration de la protéine purifiée de membrane à 0,7 mg/mL en diluant il avec le même tampon d’extraction utilisé pour isoler les protéines.
- Mix 140 µL de la protéine avec 300 µL de SUV préformé, 160 µL tampon A et 60 µL de cholate de 10 % dans un tampon A ; Cela donne à 01:30 protéines : rapport de poids de lipide dans un volume final de 660 µL.
- Agiter doucement le mélange sur une plate-forme bascule pendant 15 min.
Remarque : Les étapes suivantes peuvent s’effectuer à la température ambiante. - Passer le mélange à travers résine gel-filtration et recueillir turbides fractions contenant des protéoliposomes.
- Pellet protéoliposomes avec une ultracentrifugeuse plateau à 400 000 x g pendant 15 min.
- Jeter le surnageant contenant des protéines non reconstituée et Resuspendre le culot dans 1 mL de tampon frais A.
- Déterminer la teneur en protéines en PL et le surnageant à l’aide de la méthode Amido-noir20.
- Déterminer le rendement de la reconstitution, qui est généralement d’environ 50 à 70 %.
NOTE : Étapes 4,6 et 4,8 peuvent éventuellement être remplacées par passant solution PL par 1 mL de résine Ni-NTA emballé dans une colonne de gravité jetables et laver avec tampons A comme décrit en 3.1.2. Tel passage va se séparer des protéines non reconstituée, qui seront préférentiellement lié à la résine, de PL, plus dont sera dans le cheminement.
5. fonctionnels Tests d’activité de la protéine dans les protéoliposomes
Remarque : Les deux protéines utilisées dans cette étude sont des pompes à protons puissant qui pompent H+ dans des protéoliposomes lors de l’addition de leurs substrats (Coenzyme Q1 pour bo3-oxydase et l’ATP pour F1Fo, respectivement), ce bâtiment un gradient de protons à travers la membrane (ΔpH). En cas de succès co reconstitution par fusion, cette acidification peut être observée une diminution de fluorescence d’une sonde pH sensibles ACMA (9-amino-6-chloro-2-méthoxyacridine)12,15, qui est utilisé couramment pour ces tâches ( Figure 4 b -C). L’activité des protéines de plus axée sur le substrat (Coenzyme Q1 oxydation par bo3-oxydase22 et hydrolyse de l’ATP par F1Fo23,24) peuvent être surveillés par spectrophotométrie à l’aide de diverses méthodes. Ici, nous démontrons l’activité de l’hydrolyse d’ATP de F1Fo PL utilisant un ATP régénérant assay (Figure 4), où deux enzymes (pyruvate kinase (PK) et la lactate déshydrogénase (LDH) maintiennent une concentration constante de l’ATP comme suit. PK recycle ATP en convertissant ADP produite par F1Fo retour dans l’ATP aux dépens de son substrat phosphoénolpyruvate (PEP). Qui est un produit de cette réaction, le pyruvate est converti en lactate par LDH au détriment de la NADH, l’oxydation qui peut être contrôlée en diminuant la densité optique à 340 nm.
-
Préparation de produits chimiques
- Préparation de 1 mM ACMA stock dans l’éthanol.
- Préparer un stock de 1 mM de nigéricine (ou n’importe quel autre découpleur) dans l’éthanol.
- Préparer le stock de 25 mM de Coenzyme Q1 dans l’éthanol et stock DTT 1 M dans un tampon A.
- Préparation d’un stock de 100 mM ATP en tampons A et ajuster son pH à 7,4.
- Préparer des stocks d’ATP régénérant des composants du système tampon A: 100 mM PEP, NADH de 1 mM, et solutions de PK et LDH à concentration de ~ 500-1 000 unités/mL.
-
Coenzyme Q1 pilotée par oxydation proton pompage par bo3-oxydase PL
- Ajouter 20 µL de PL dans une cuvette de fluorimètre avec tampons 2 mL A en présence de 0,5 µM ACMA et attendre le signal stable à l’aide de 430 nm excitation et 515 nm d’émission.
- Ajouter 40 µM Coenzyme Q1 à la cuvette.
- Initier le proton pompage en ajoutant 2 mM DTT au PL (Figure 4 b).
NOTE : TNT réduit oxydé Coenzyme Q1 et rend accessible au bo3-oxydase. - Dissipent ΔpH formé en ajoutant 2 découpleur µM (par exemple nigéricine). Signal de fluorescence ACMA devrait revenir rapidement à presque le niveau d’origine.
Remarque : Il ne faudrait aucun ACMA trempe lors de l’addition du substrat, si le découpleur est initialement présent dans le mélange réactionnel.
-
Proton de pilotée par l’hydrolyse d’ATP de pompage de F1FoPL
- Ajouter 40 µL de PL dans une cuvette de fluorimètre comme décrit au point 5.2.
- Initier le proton pompage en ajoutant ATP de 0,2 mM à PL (Figure 4).
- Dissiper les ΔpH comme décrit dans 5.2.4.
-
Hydrolyse de l’ATP par F1FoPL et sa stimulation par découpleur
- Ajouter 40 µL de PL dans une cuvette de spectrophotomètre avec 2 mL tampon A, contenant 1 mM ATP, NADH de 0,2 mM, 2 mM PEP et 15 µL de chaque de PK et LDH.
- Suivre la réaction en mesurant la diminution de l’absorbance du NADH à 340 nm. 3-4 min plus tard, ajouter 2 découpleur µM à la cuvette pour libérer la contre-pression de ΔpH sur l’hydrolyse de l’ATP. La vitesse de réaction devrait augmenter immédiatement.
NOTE : PL traversé résine Ni-NTA comme décrit dans 4.10 démontrera la stimulation plus forte par le découpleur (Figure 4, rouge trace), tandis que l’éluat sera à peine stimulée (trace bleue).
6. essai Influence du milieu lipidique et de la force ionique sur la fonctionnalité des protéines membranaires aux coniques protéoliposomes
- Évaluer le proton pompage de 40 µL de PL+, PL– et PL0 avec dosage trempe ACMA dans 2 mL de tampon D additionné de 1 MgCl2 et 20 (Figure 5, groupe A) ou 100 mM KCl (groupe B), comme décrit dans 5.2 ou 5.3 (Figure 5 des traces de rouges, noirs et bleus).
- Fusible 40 µL de PL+ avec le même volume de LUV– dans 2 mL de tampon D additionné de 20 mM KCl et test d’une trempe (trace verte) ACMA.
- Exécuter des expériences de contrôle comme dans l’étape 2 en mélangeant, par exemple, PL et SUV de même charge (trace de gris).
NOTE : Proton pompage devrait être améliorée en traduisaient PL.
7. livraison des protéines membranaires dans LUV et GUV de coniques protéoliposomes
- Fusible 50 µL de PL+ avec 50 µL de 800 nm LUV– dans 1 mL de tampon D complété avec 1 mM MgCl2et 20 mM KCl pendant 5 min.
- Pellet les vésicules à 6 000 x g pendant 5 min et jeter le surnageant contenant n’a pas réagi PL+. Resuspendre le culot dans 1 mL de tampon D additionné de 1 mM MgCl2 et 100 mM KCl, puis répétez la granulation et resuspendant deux fois plus.
- Exécutez l’ACMA trempe le test décrit à 5.2 ou 5.4.
- Exécuter des expériences de contrôle, tout comme aux étapes 1-3, à l’aide de combinaisons de complémentaires vésicules chargées en sel élevée (200 mM KCl), des vésicules non-coniques et juste vide LUV– sans PL+.
NOTE : Proton pompage par après LUV devrait être détecté uniquement lorsque la complémentarité chargée de vésicules ont été utilisés comme illustré à la Figure 6.
8. montage de la chaîne de Transport d’électrons provenant des composants individuels dans les Membranes de LUV et GUV et la Production d’ATP par cette chaîne.
Remarque : Un schéma de cette procédure est illustré dans la Figure 7 a. ATP produite dans cette expérience sera enregistré par le système luciférine-luciférase, où la conversion de l’ATP synthétisée en pyrophosphate et AMP de la luciférase est suivie luminescence enregistré avec un luminomètre. Nous recommandons d’utiliser un luminomètre simple-tube, au lieu des luminomètres microplaque moins sensibles.
- Mix 3 µL de bo3-oxydase PL+ et 5 µL de F1Fo PL+ forment comme décrit à la Section 4.
- Les fusionner avec 3 µL de LUV ou GUV– (formé comme décrit dans la Section 2) en 800 µL de tampon D additionné de 20 mM de KCl et 1 mM MgCl2 pendant 5 min.
- À l’aide de stocks de haute concentration, ajoutez KCl et vadrouilles à 100 mM et 50 mM de concentration finale aux membranes traduisaient.
Remarque : En cas de fusion après LUV, cette étape empêche leur gonflement en raison du décalage osmotique entre l’externe (tampons A) et l’intravésiculaire (tampon D) concentration des sels.- Éventuellement, les membranes traduisaient à pellets comme décrit au point 7.2 de séparer SUV n’ayant pas réagi+et Resuspendre le culot dans 800 µL de tampon A.
- Préparer 200 µL d’une luciférine-luciférase-ADP cocktail contenant 400 µM ADP, 50 luciférine µM et 2,5 µg luciférase dans tampons A
- Ajouter le cocktail au mélange traduisaient de Step8.3.
- Ajouter 40 µM d’oxydé Coenzyme Q1et déclencher la mise sous tension des membranes traduisaient par bo3-oxydase en ajoutant 2 mM TNT. Attendre 1 min.
- Initier la synthèse d’ATP par l’ajout de phosphate de potassium de 5 mM (PKj’ai, pH 7,4) aux vésicules sous tension et de détecter la production d’ATP avec un luminomètre (Figure 7 b). Exécutez la réaction pendant environ 3 min.
NOTE : Réaction de synthèse d’ATP produit pendant 5-7 min jusqu'à épuisement de l’oxygène consommé par bo3-oxydase et la luciférase. - Ajouter étalon de référence ATP (0,5 nmol ATP) au mélange réactionnel deux fois. Mesure ATP produites.
- Obtenir le montant réel de l’ATP produit lors de la réaction en divisant le signal de la réaction de synthèse d’ATP par le signal standard de référence de ATP. Régler cette valeur sur la quantité totale de F1Fo utilisés dans la réaction et enfin d’exprimer le taux de synthèse de l’ATP en µmol ATP / (mg F1Fo* min).
Résultats
L’utilisation de fusogène complémentaires-facturé protéoliposomes pour livraison rapide sans tensioactifs de protéines membranaires en membranes bicouches cible comprend trois étapes (Figure 1) : A, formation de fusogène SUV de mélanges lipides avec haute teneur en lipides chargés ; Ces SUV peut-être éventuellement porter une charge intravésiculaire ; B, conversion de fusogène SUV en PL à l’aide de notre reconstitution de protéines membranaires rapide ; C, fusion de fusogène PL avec bicouches de cible dans un milieu pauvre en sel, suivi par l’addition de sel élevée pour arrêter la réaction de fusion. En cas de grosses vésicules (D), une stratégie idéale est de livrer des protéines de la membrane dans la bicouche cible anionique, qui offre un meilleur environnement de lipides pour l’activité des protéines membranaires (discutées plus loin dans le texte).
Le protocole de formation GUV avec méthode inversée émulsion est surligné en détail à la Figure 2. Nous préférons utiliser hexadécane dans le mélange de lipides-huile en raison de son relativement élevée (18 ° C) température de congélation, qui permet un retrait facile du pétrole solidifié après GUV granulation.
La figure 3 illustre la fusion des vésicules à l’aide de la méthode de cobalt-calcéine-EDTA. Fusion est perçue uniquement lorsque vésicules chargées complémentaires sont utilisés dans des tampons de sels faibles, tandis que des concentrations plus élevées de sels (> 50 mM14) ou l’utilisation de non-fusogène vésicules ne démontrer aucune fusion.
Ce protocole rapide de reconstitution des protéines membranaires dans fusogène SUV est illustré dans la Figure 4 a. Utilisant ce protocole, nous démontrons rapide reconstitution du primaire proton pump bo3-oxydase et F1Fo ATP synthase en PL et évaluation de leur activité spécifique dans ces membranes. Il est important de mentionner que le rendement de la reconstitution de la protéine ne dépend pas de l’accusation d’un lipide utilisé15 et est d’environ 50-75 %25,12, et qu’après reconstitution en PL, la protéine peut être conservée pendant au moins trois jours, même à température ambiante sans perte d’activité de la protéine. Cette procédure fournit également une orientation unidirectionnelle de l’ATP synthase, où plus de 95 % de celui-ci a sa portion hydrophile F1 orientée vers l’extérieur15,26.
La figure 5 montre que le proton pompage activité de F1Fo (groupe A) et bo3-oxydase (groupe B) en lipides cationiques est réduite et sensible à faible force ionique, par rapport à environnement lipidique anioniques et neutres, mais cet effet est atténué dans les membranes traduisaient après fusion PL+ avec anionique LUV–.
La figure 6 montre livraison de F1Fo ATP synthase dans les membranes de grosses vésicules. Dans cette expérience, PL+ et 800 nm LUV– ont été fusionnés dans 20 mM KCl pendant 5 min et le produit de réaction est granulée pour supprimer sans fusible PL+, remis en suspension et dosé pour le pompage de proton. Des expériences de contrôle ne montrent aucun pompage de proton lorsque LUV0 au lieu de LUV– ont été utilisés dans la réaction de fusion (trace noire) ou vide LUV– seul ont été dosé (trace bleue).
Montage rapide d’une chaîne de transport d’électrons performante dans les membranes de grosses vésicules par fusogène PL est illustré à la Figure 7. Nous avons utilisé F1Fo SUV+ et bo3 SUV+ pour la fusion avec 800 nm LUV-et démontré la production d’ATP par cette chaîne dans les vésicules traduisaient en ajoutant séquentiellement Coenzyme Q1 et sur la TNT pour dynamiser les membranes et puis en ajoutant phosphate pour déclencher la synthèse d’ATP par F1Fo.
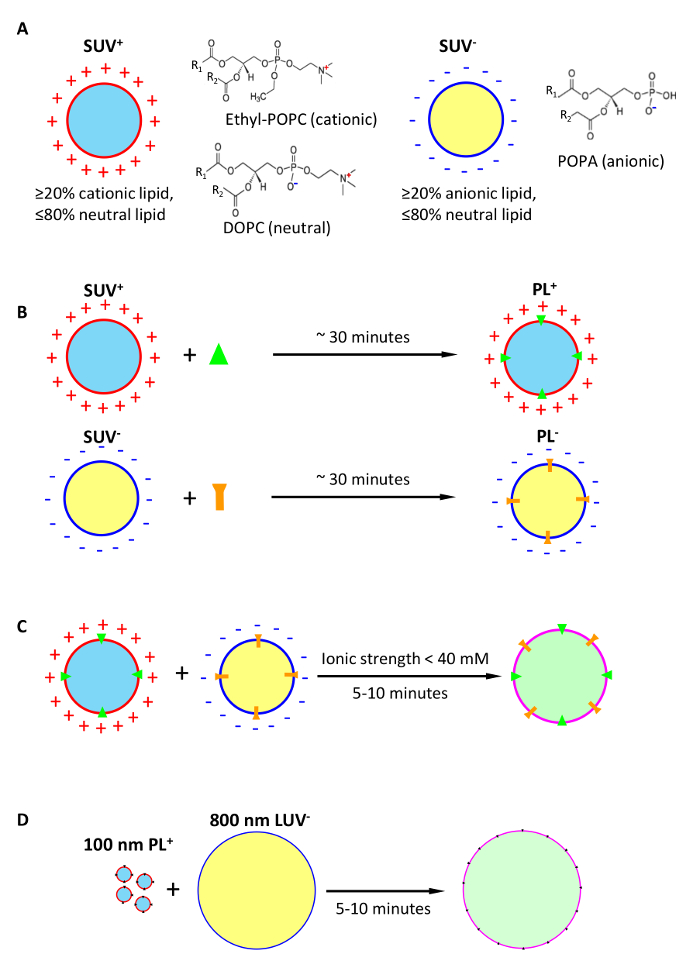
Figure 1 : Conception de livraison ultrarapide sans tensioactifs des protéines membranaires dans les bicouches lipidiques cible via la fusion de vésicules unilamellaires formée de lipides chargés complémentaires. (A) formation de fusogène cationiques et anioniques petites vésicules unilamellaires (+de SUV, SUV–) éventuellement chargés de cargaisons intravésiculaire. (B) la Conversion de fusogène vus dans des protéoliposomes coniques (PL) de reconstitution des protéines membranaires. (C) sans tensioactifs livraison de protéines membranaires en membranes traduisaient fusogène stratégie préférable de PL. (D) pour la livraison de protéines membranaires en membranes de grosses vésicules, illustrées par la fusion entre 100 nm PL+ et 800 nm LUV–. S’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
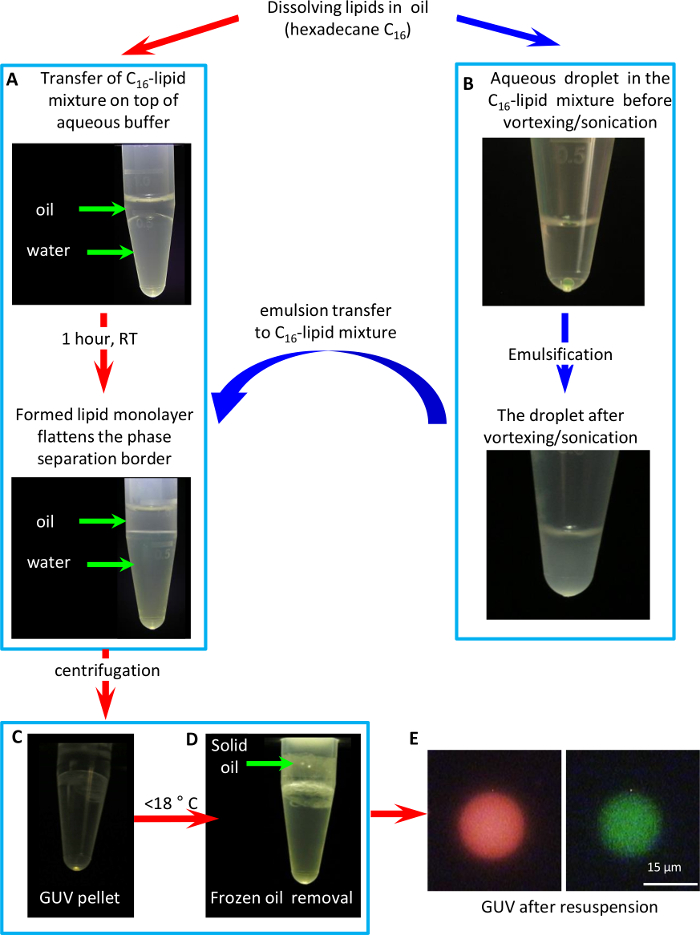
Figure 2 : protocole formation GUV avec une méthode d’émulsion inversé. (A) Formation d’une monocouche de lipides sur la frontière entre le mélange huile-lipides et l’eau. (B) Formation d’une émulsion (eau dans huile) inversée. (C) GUV formation en passant l’émulsion à travers la frontière de la huile-eau par centrifugation. Refroidissement (D) du tube ci-dessous < 18 ° C à solidifier et à enlever l’huile. (E), une image de microscopie de fluorescence d’un GUV contenant des lipides fluorescents (1 % poids fraction cholestéryle-Bodipy-FL12) dans sa membrane (vert) et un fluorophore polaire (1 mM Sulforhodamine 101) dans le lumen de vésicule (rouge). S’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
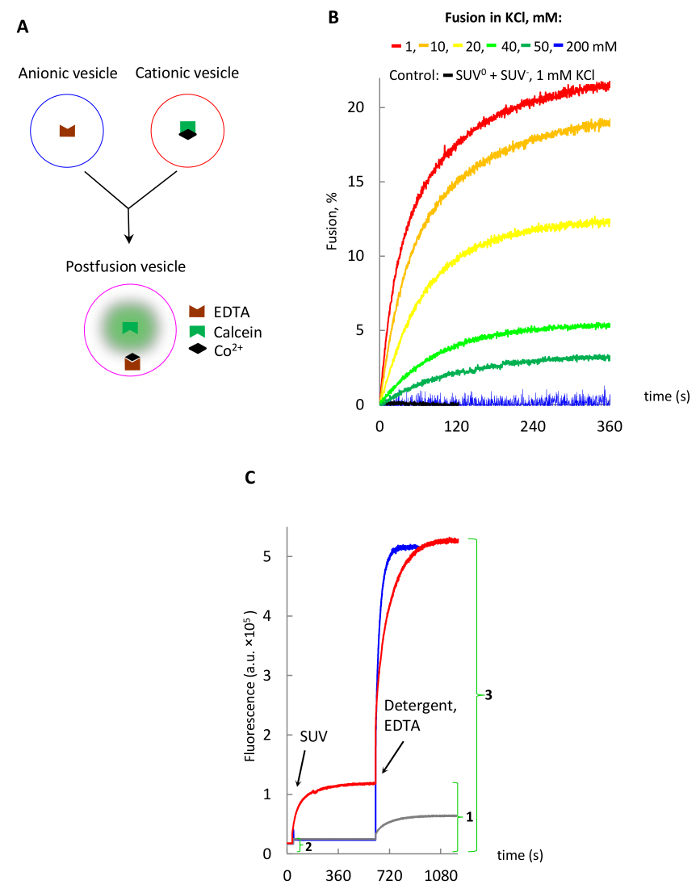
Figure 3 : fusion des vésicules lipidiques a étudié avec la méthode de cobalt-calcéine-EDTA. Schéma (A) de la méthode, où calcéine gratuit est sorti d’un complexe non fluorescent cobalt-calcéine EDTA. (B) Fusion des SUV en diverses concentrations de KCl. (C) sortie de la calcéine intravésiculaire par addition d’EDTA et Triton X-100 détergent aux vésicules traduisaient montré en B tel que décrit dans le texte. L’ampleur de la fusion (%) pour la trace rouge est calculé en divisant le signal maximal corrigées fusion (1 - 2) par le signal maximal-corrigées suite à la sortie de calcéine encapsulé (3-2) et en multipliant par 100. S’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
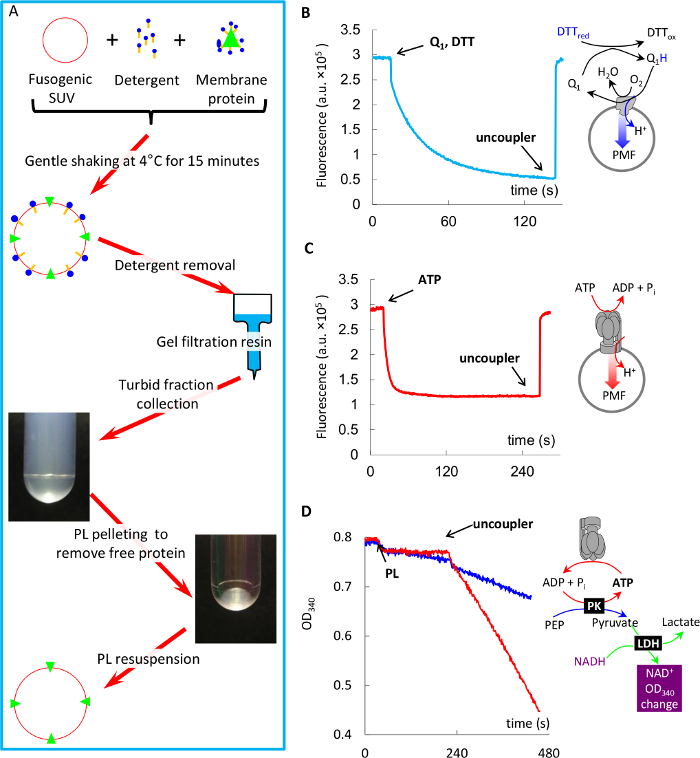
Figure 4 : Reconstitution ultrarapide de bo3-oxydase et F1Fo en protéoliposomes coniques et mesures de l’activité protéine dans ces protéoliposomes. (A) schéma du protocole de reconstitution. (B), Coenzyme Q1 oxydation conduite proton pompage par bo3-oxydase dans PL mesurée avec l’ACMA trempe (expliqué dans le texte). (C), ATP pilotée par hydrolyse proton pompage de F1Fo pl mesurée avec l’ACMA trempe (expliqué dans le texte). (D), ATP hydrolyse de F1Fo pl mesurée avec le système ATP-régénérant (expliqué dans le texte) et sa stimulation par découpleur. S’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
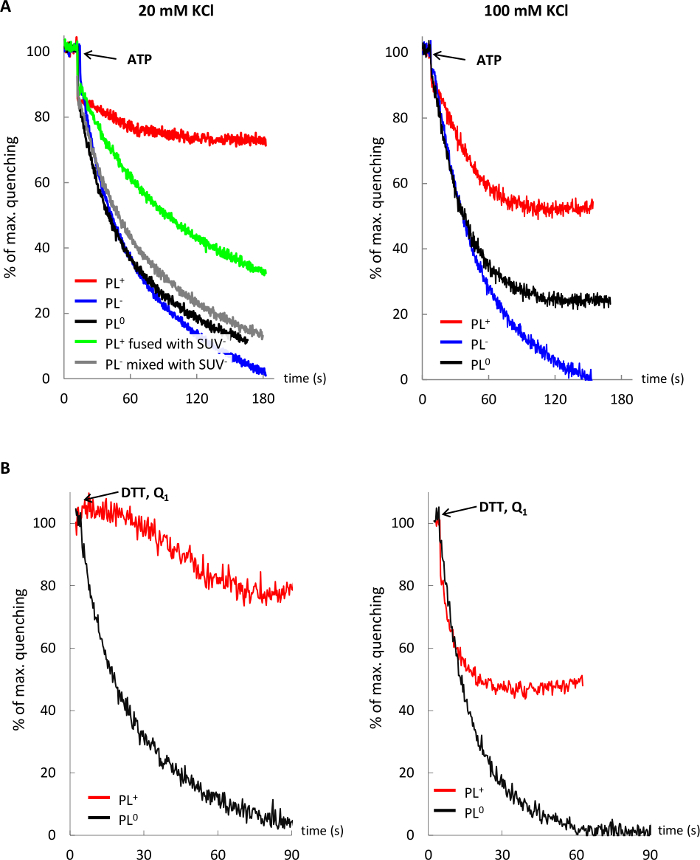
Figure 5 : Influence de l’environnement lipidique et de la force ionique sur l’activité des protéines membranaires. Proton pompage de F1Fo (A) et bo3-oxydase (B) en PL cationique (trace rouge), PL anionique (trace bleue), PL neutre (trace noire) et PL cationique fusionné avec anionique LUV (trace verte) à 20 et 100 mM (trace) contrôle KCl. gris) ne présente aucun changement dans le proton pompage de F1Fo PL– à mélange avec vus–. S’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
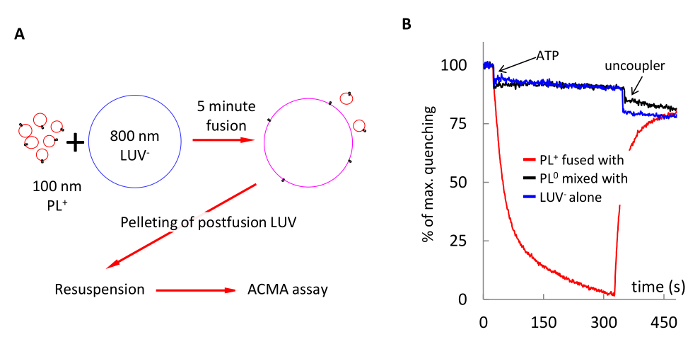
Figure 6 : Livraison de F1Fo ATP synthase dans les membranes de 800 nm LUV– via fusion avec PL+. (A) schéma de l’expérience : PL+ et 800 nm LUV– ont été fusionnés dans 1 mM MOPS (pH 7,4), 1 mM MgCl2, 20 mM KCl pendant 5 min, granulé pour supprimer libre PL et resuspendues dans le même tampon. (B) Proton pompage par le traduisaient LUV (trace rouge). Des expériences de contrôle ont montré aucune ACMA trempe quand PL0 ont été mélangés avec LUV– (traces noires), ou vide LUV– seul ont été dosé (trace bleue). S’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
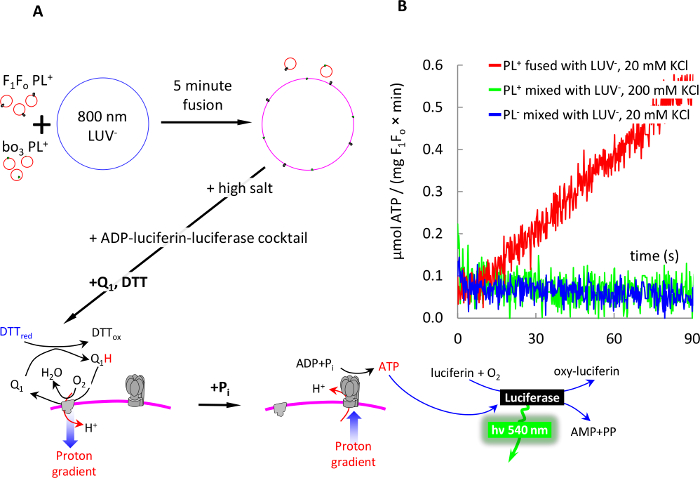
Figure 7 : 5 min sans tensioactifs assemblage d’une chaîne de transport des électrons dans les membranes de 800 nm LUV– via fusion avec PL+. (A) schéma de l’expérience : 100 nm F1Fo PL+ et 100 nm bo3-oxydase PL+ ont été fusionnés à LUV-, tel que décrit à la Figure 6. Fusion a été arrêtée par l’ajout de KCl et vadrouilles à 100 et 50 mM, respectivement. Les membranes ont été mélangées avec ADP-luciférine-luciférase cocktail et dynamisés par l’ajout de DTT et Q1, tel que décrit dans le texte. La production d’ATP a été initiée par addition de 1 mM de phosphate (Pj’ai) et surveillé en temps réel avec système luciférine-luciférase tel que décrit dans le texte. (B), ATP synthèse par traduisaient vésicules (trace rouge). Expériences de contrôle ont montré aucune production d’ATP lorsque LUV– , PL+ étaient mêlés en sel élevée (gris) ou PL0 ont été mélangés avec LUV– (noir). Taux de synthèse d’ATP a été calculée comme il est expliqué dans le texte (étapes 8,8-8,9). S’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
Discussion
Ce qui suit que quelques questions doivent être examinées pour le succès de cette approche expérimentale :
Choix des lipides responsable bicouches protéoliposomes et cible : Lipides cationiques ne se trouvent pas dans la nature, tandis que les lipides anioniques sont abondants dans les membranes biologiques, atteignant, par exemple, environ 25, 35 et 20 % dans la membrane interne de e. coli, la membrane plasmique de la levure S. cerevisiaeet les membranes mitochondriales internes de beaucoup d’espèces, respectivement27,28,29. Il serait raisonnable de s’attendre que la fonctionnalité des protéines membranaires, PL+ peut être affectée par la force d’une charge positive de la bicouche, qui dépendrait à son tour une teneur relative en lipide cationique dans la bicouche et externes ionique Force. Par conséquent, il est important de régler expérimentalement dans quelle mesure la fonctionnalité des protéines membranaires d’intérêt dépendra de la charge de l’environnement du lipide cationique. Ici, nous montrons que les deux F1Fo ATP synthase et bo3-oxydase sont sensibles à l’environnement du lipide cationique, mais nous avons réussi à moduler et inverser cet effet en plaçant les protéines en PL+ et les livrant en premier anionique acceptant des bicouches et ensuite augmenter la force ionique du milieu réactionnel après fusion est terminée.
Choix d’un lipide cationique particulière : La plupart des lipides cationiques disponibles dans le commerce sont de nature non-triacylglycérides ; donc un lipide de candidats potentiels doit être testé pour la compatibilité avec les protéines de la membrane d’intérêt. Nous avons trouvé précédemment15 que l’ATP synthase utilisée dans cette étude a montré que sa meilleure performance en PL+ formé d’éthyle-PC, qui a la plus forte similarité structurelle pour les lipides naturels triacylglycérides, tandis que dans DOTAP (non-triacylglycérides lipidique) PL+ cette protéine est moins active.
Essais de fusion vésiculaire : La fusion des vésicules vrai (lorsque le contenu liquide intravésiculaire mix) doit être distingué de l’hémi-fusion des États intermédiaires, lorsque les vésicules adhèrent les uns aux autres sans mélanger leur contenu aqueux, mais facilement mélangent le contenu de leur externe, ou les deux lipides Folioles nombreuses sur30. Dans le cas de mélanges lipides sous-optimaux ou certaines conditions, des vésicules démontrent également prononcé de fuite liquide contenu entre fusion le31. Les concentrations minimales de lipides chargés dans des mélanges fusogène permettant la fusion vraie doivent être trouvées expérimentalement pour chaque espèce de lipides, mais en général, il est a constaté que les membranes avec moins de 10 % lipides sont rendus non-fusogène 32.
Tout en formant fusogène vus en présence d’ions multi-valent, il est important de ne pas mélanger les composants chargés opposée, car cela pourrait causer agglomérante immédiate et l’agrégation des lipides de ces ions. Par exemple, tout en préparant les SUV pour la méthode de cobalt-calcéine-EDTA, il est important d’éviter de mélanger un mélange de lipides cationiques avec EDTA pour prévenir le colmatage du filtre en polycarbonate de composants contagieuse.
Il est également important de mentionner que la méthode de cobalt-calcéine-EDTA, tout en étant très sensible et pratique pour le suivi de la fusion en temps réel, peut-être encore sous-estimer l’ampleur de la fusion en raison de 1) auto extinction de la fluorescence de calcéine libre à l’intérieur les vésicules traduisaient, qui devrait atteindre 1 mM, alors que le seuil d’extinction automatique est signalé à être environ 20 µM33et 2) surface-bondissent cobalt-calcéine, qui demeure lié à SUV+ même après un passage à la résine gel-filtration et couleurs des vésicules vers une couleur orange vif, tandis que SUV0 ont une couleur orange pâle. Notez également que sortie de la cobalt-calcéine lié à l’addition de détergent Triton X-100 en présence d’EDTA génère des signaux beaucoup plus fortes pour SUV+ (Figure 3, trace rouge) à SUV0 (trace de gris).
Perspectives: gageons que rapides approches décrites ici peuvent grandement faciliter et accélérer l’Assemblée des membranes complexes pour répondre aux besoins des nouvelles applications de la biologie synthétique. Notre protocole de reconstitution de protéine de membrane prend seulement une demi-heure pour la reconstitution des protéines membranaires grand fragile connu à être sensibles aux techniques de longue reconstitution axée sur la dialyse, alors que cette approche fusogène prend seulement 5-10 min de livrer ces protéines dans les bicouches lipidiques grand. Ici, nous démontrer les avantages de ces approches en manipulant des e. coli F1Fo ATP synthase, qui est un exemple d’une protéine fragile. Il est composé de 23 sous-unités et on sait facilement perdre son intégrité si exposés à des conditions sous-optimales (par exemple, chaleur) pendant/après solubilisation, mais utilisé dans ces procédures, la protéine montre de façon reproductible de forte activité de pompage de proton.
Déclarations de divulgation
Les auteurs n’ont rien à divulguer.
Remerciements
Auteurs sont reconnaissants à Robert Gennis de l’Université de l’Illinois et Christoph von Ballmoos de l’Université de Berne pour la fourniture d’un plasmide et une souche d’exprimer bo3-oxydase. Le projet a été soutenu par BBSRC octroyer BB/L01985X/1 à R.I. et R.B.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Lipide neutre DOPC | Avanti Lipides | 850375 | |
| Lipide anionique POPA | Avanti Lipides | 840857 | |
| E-PC Lipide cationique | Avanti Lipides | 890704 | |
| Cholesteryl-Bodipy-FL12 | Thermofisher | C3927MP | |
| Sephadex G-50, Super Fine | Sigma | G5050 | |
| Ficoll 400, Type 400-DL | Sigma | F8016 | |
| ACMA | Sigma | A5806 | |
| Nigericin | Sigma | N7143 | |
| ATP | Sigma | A26209 | |
| Q1 | Sigma | C7956 | |
| DTT | Sigma | D0632 | |
| PEP | Sigma | 860077 | |
| NADH | Sigma | N8129 | |
| PK | Sigma | P9136-1KU | |
| LDH | Sigma | L1254-1KU | |
| Luciferin | Sigma | L6882 | |
| Luciferase | Sigma/Roche | 10411523001 | |
| Calcein | Insight Biotechnology | sc-202090 | |
| CoCl2 | Sigma | C8661 | |
| EDTA | Sigma | E6758 | |
| Sulforhodamine 101 | Sigma | S7635 | |
| Système d’extrusion | Extrudeuse | ||
| Luminomètre monotube, modèle Sirius L | Titertek Berthold | ||
| Filtre en polycarbonate, D19 mm | Sigma, Whatman NucleporeMembranes gravées sur chenilles | WHA800309, WHA800284 | 100 ou 200 nm pour former SUV, et 400 ou 800 nm pour LUV |
| Name | Company | Numéro de catalogue< | strong>Comments |
| Tampons utilisés dans le papier | |||
| Buffer A | 100 mM KCl, 50 mM MOPS pH 7,4, 1 mM MgCl2 | ||
| Buffer B | 20 mM KCl, 10 mM MOPS pH 7,4, 0,1 mM MgCl2 | ||
| Buffer C | 100 mM KCl, 10 mM MOPS pH 7,4 | ||
| Buffer D | 1 mM MOPS pH 7,4 Diverses concentrations de KCl |
Références
- Rigaud, J. L., Levy, D. Reconstitution of membrane proteins into liposomes. Liposomes, Pt B. 372, 65-86 (2003).
- Johnson, M., et al. Two-dimensional crystallization of membrane proteins by reconstitution through dialysis. Methods Mol Biol. 955 (31-58), 31(2013).
- Dezi, M., et al. Detergent-mediated incorporation of transmembrane proteins in giant unilamellar vesicles with controlled physiological contents. Proc Nat Acad Sci U S A. 110 (18), 7276-7281 (2013).
- Girard, P., et al. A new method for the reconstitution of membrane proteins into giant unilamellar vesicles. Biophys J. 87 (1), 419-429 (2004).
- Angelova, M., et al. Preparation of Giant Vesicles by External Ac Electric-Fields - Kinetics and Applications. Trends in Colloid and Interface Science Vi. 89, 127-131 (1992).
- Leptihn, S., et al. Constructing droplet interface bilayers from the contact of aqueous droplets in oil. Nature Protocols. 8 (6), 1048-1057 (2013).
- Villar, G., Graham, A. D., Bayley, H. A Tissue-Like Printed Material. Science. 340 (6128), 48-52 (2013).
- Khalil, A. S., Collins, J. J. Synthetic biology: applications come of age. Nat Rev Genet. 11 (5), 367-379 (2010).
- Smith, M. T., Wilding, K. M., Hunt, J. M., Bennett, A. M., Bundy, B. C. The emerging age of cell-free synthetic biology. FEBS Lett. 588 (17), 2755-2761 (2014).
- Church, G., et al. Realizing the potential of synthetic biology. Nat Rev Mol Cell Biol. 15 (4), 289-294 (2014).
- Gao, Y., et al. Single reconstituted neuronal SNARE complexes zipper in three distinct stages. Science. 337 (6100), 1340-1343 (2012).
- Nordlund, G., Brzezinski, P., von Ballmoos, C. SNARE-fusion mediated insertion of membrane proteins into native and artificial membranes. Nat Commun. 5, 4303(2014).
- Decout, A., et al. Enhanced efficiency of a targeted fusogenic peptide. Biochimica Et Biophysica Acta-Biomembranes. 1372 (1), 102-116 (1998).
- Chan, Y. H., van Lengerich, B., Boxer, S. G. Effects of linker sequences on vesicle fusion mediated by lipid-anchored DNA oligonucleotides. Proc Natl Acad Sci U S A. 106 (4), 979-984 (2009).
- Ishmukhametov, R. R., Russell, A. N., Berry, R. M. A modular platform for one-step assembly of multi-component membrane systems by fusion of charged proteoliposomes. Nat Commun. 7, 13025(2016).
- Biner, O., et al. Delivery of membrane proteins into small and giant unilamellar vesicles by charge-mediated fusion. FEBS Lett. 590 (14), 2051-2062 (2016).
- Bian, T., et al. Direct detection of SERCA calcium transport and small-molecule inhibition in giant unilamellar vesicles. Biochem Biophys Res Commun. 481 (3-4), 206-211 (2016).
- Schuette, C. G., et al. Determinants of liposome fusion mediated by synaptic SNARE proteins. Proc Natl Acad Sci U S A. 101 (9), 2858-2863 (2004).
- Spencer, A. C., Torre, P., Mansy, S. S. The encapsulation of cell-free transcription and translation machinery in vesicles for the construction of cellular mimics. J Vis Exp. (80), e51304(2013).
- Verchere, A., et al. In vitro investigation of the MexAB efflux pump from Pseudomonas aeruginosa. J Vis Exp. (84), e50894(2014).
- Kaplan, R. S., Pedersen, P. L. Determination of Microgram Quantities of Protein in the Presence of Milligram Levels of Lipid with Amido Black B-10. Analytical Biochemistry. 150 (1), 97-104 (1985).
- Rumbley, J., et al. One-step purification of histidine-tagged cytochrome bo3 from Escherichia coli and demonstration that associated quinone is not required for the structural integrity of the oxidase. Biochim Biophys Acta. 1340 (1), 131-142 (1997).
- Taussky, H. H., Shorr, E. A Microcolorimetric Method for the Determination of Inorganic Phosphorus. Journal of Biological Chemistry. 202 (2), 675-685 (1953).
- Galkin, M. A., Ishmukhametov, R. R., Vik, S. B. A functionally inactive, cold-stabilized form of the Escherichia coli F1Fo ATP synthase. Biochimica Et Biophysica Acta-Bioenergetics. 1757 (3), 206-214 (2006).
- Ishmukhametov, R. R., Galkin, M. A., Vik, S. B. Ultrafast purification and reconstitution of His-tagged cysteine-less Escherichia coli F1Fo ATP synthase. Biochim Biophys Acta. 1706 (1-2), 110-116 (2005).
- Wiedenmann, A., Dimroth, P., von Ballmoos, C. Deltapsi and DeltapH are equivalent driving forces for proton transport through isolated F(0) complexes of ATP synthases. Biochim Biophys Acta. 1777 (10), 1301-1310 (2008).
- Morein, S., et al. Wild-type Escherichia coli cells regulate the membrane lipid composition in a "window" between gel and non-lamellar structures. J Biol Chem. 271 (12), 6801-6809 (1996).
- Zinser, E., et al. Phospholipid synthesis and lipid composition of subcellular membranes in the unicellular eukaryote Saccharomyces cerevisiae. J Bacteriol. 173 (6), 2026-2034 (1991).
- Daum, G., Vance, J. E. Import of lipids into mitochondria. Prog Lipid Res. 36 (2-3), 103-130 (1997).
- Pantazatos, D. P., MacDonald, R. C. Directly observed membrane fusion between oppositely charged phospholipid bilayers. J Membr Biol. 170 (1), 27-38 (1999).
- Pantazatos, D. P., Pantazatos, S. P., MacDonald, R. C. Bilayer mixing, fusion, and lysis following the interaction of populations of cationic and anionic phospholipid bilayer vesicles. J Membr Biol. 194 (2), 129-139 (2003).
- Sunami, T., et al. Detection of association and fusion of giant vesicles using a fluorescence-activated cell sorter. Langmuir. 26 (19), 15098-15103 (2010).
- Memoli, A., et al. Effects of surfactants on the spectral behaviour of calcein (II): a method of evaluation. J Pharm Biomed Anal. 19 (3-4), 627-632 (1999).
Réimpressions et autorisations
