Nous décrivons ici un protocole pour obtenir l’index de gouttelettes de lipides (index LD) pour étudier la dynamique des triacylglycérols dans les cellules cultivées dans des expériences de haut débit. L’essai d’index LD est une méthode simple et fiable qui utilise BODIPY 493/503. Ce test n’a pas besoin dispendious extraction de lipides ou d’analyse de la microscopie.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Lipides Index détermination par Fluorescence liquide de récupération dans le champignon pathogène Ustilago Maydis
* These authors contributed equally
Dans cet article
Résumé
Résumé
L’article montre comment implémenter le test d’indice de LD, qui est un dosage sensible microplaque pour déterminer l’accumulation des triacylglycérols (TAGs) dans des gouttelettes lipidiques (LDs). Indice de LD est obtenu sans extraction de lipides. Il permet de mesurer le contenu de LDs dans des expériences de haut débit dans des conditions différentes, telles que croissance riche ou médias azote appauvri. Bien que la méthode a été décrite pour la première fois d’étudier le métabolisme de gouttelettes de lipides chez Saccharomyces cerevisiae, il a été appliqué avec succès pour le basidiomycète Ustilago maydis. Fait intéressant, et parce que le LDs sont des organites phylogénétiquement conservées dans les cellules eucaryotes, la méthode peut être appliquée à une grande variété de cellules, de la levure pour les cellules de mammifères. L’index LD repose sur le test de récupération de liquide de fluorescence (LFR) de la BODIPY 493/503 dans des conditions de refroidissement, par l’ajout de cellules fixé avec le formaldéhyde. Iode de potassium est utilisé comme un extincteur de fluorescence. Le rapport entre la fluorescence et les pentes de la densité optique est appelé indice de LD. Pentes sont calculées à partir de droites obtenues lorsque BODIPY fluorescence et la densité optique à 600 nm (OD600) sont tracées contre l’ajout de l’échantillon. Qualité des données optimale se traduite par des coefficients de corrélation égales ou supérieure à 0,9 (r ≥ 0,9). Plusieurs échantillons peuvent être lues en même temps qu’elle peut être implémentée dans une microplaque. BODIPY 493/503 étant un fluorescent lipophile teindre que les partitions dans les gouttelettes de lipides, il peut être utilisé dans de nombreux types de cellules qui s’accumulent de LDs.
Introduction
Gouttelettes lipidiques (LDs) sont omniprésents corps gras intracellulaires, composés d’un noyau de lipides neutres, principalement des TAGs et des esters de stérol (SE). Le noyau est entouré d’une monocouche de phospholipides qui interagit avec les protéines comme perilipin et enzymes impliquées dans la synthèse de lipides neutres, tels que le diacylglycérol acyl-transférase, l’acétyl-CoA carboxylase et l’acyl-CoA synthase1. En raison de son comportement dynamique, la monocouche de phospholipides contient également des triacylglycérol lipase qui hydrolysent les TAGs et SE2. Selon le type de cellule et de l’organisme, lipides neutres stockées peuvent être utilisés pour produire de l’énergie, ou synthétisent des phospholipides et des molécules de signalisation. Chez les levures et autres champignons, le contenu du LDs change en réponse aux variations du rapport carbone/azote dans les milieux de culture, ce qui indique qu’une diminution d’azote disponible pourrait être la clé pour augmenter les lipides neutres production3,4 ,,5. La production de quantités élevées de TAGs dans la levure a une utilisation potentielle en biotechnologie comme source de biocarburants et de l’industrie alimentaire. Certains lipides stockés contiennent des proportions élevées d’acides gras polyinsaturés, comme les oméga 3 et oméga 6, avec importance nutritionnelle et alimentaire 6,7,8,9,10 , 11. si des cellules de mammifères, y compris les cellules humaines, contiennent également des TAGs et des esters de cholestérol. La monocouche de phospholipides interagit avec les mammifères homologues des protéines décrites dans la levure LDs et avec une protéine additionnelle, perilipin, qui est absente dans le S. cerevisiae12. On a proposé le rôle de la monocouche de phospholipides et ses protéines associées est pour stabiliser la structure de LDs et autoriser l’interaction du LDs avec organites comme les mitochondries, le réticulum endoplasmique, peroxysomes et vacuoles, principalement pour l’échange de lipides 13,,14. Fait intéressant, chez les humains, LDs semblent être impliqués dans des pathologies comme le diabète de type 2, l’athérosclérose, stéato-hépatite et maladie coronarienne, dans lequel il y a une augmentation de leur nombre 15,16,17 . Certains types de virus utilisent LDs comme plates-formes pour assembler les virions 2,18,19.
En raison des implications des LDs dans des pathologies humaines et leur utilisation biotechnologique, l’exacte détermination expérimentale de la formation de LDs est une tâche importante. Cet article décrit un test fiable basé sur la récupération de la fluorescence (LFR) de BODIPY 493/503 (4, 4-difluoro-1, 3, 5, 7, 8-pentaméthyl-4-bora-3 a, 4 a-diaza-s-indacene), pour obtenir une valeur relative de la teneur en lipides neutres dans les cellules. Avec ce test, il est possible de suivre la dynamique de l’accumulation de lipides neutres chez les champignons comme U. maydis et S. cerevisiae, ainsi que dans les cellules de mammifères, sans besoin d' extraction de lipides 20. La méthode a été appliquée pour la première fois chez S. cerevisiae pour identifier les protéines phosphatases et kinases impliquées dans la régulation du métabolisme des lipides. Cela n’était possible sans extraction de lipides ou de purification de protéine21,22. LFR a également servi à créer la dynamique de formation de LDs dans les macrophages péritonéaux23. L’utilisation de BODIPY 493/503 a certains avantages par rapport aux autres colorants de lipides neutres comme du Nil rouge. BODIPY 493/503 est hautement spécifique de lipides neutres et a un spectre d’émission étroit, facilitant la détection simultanée de signaux de colorants comme protéine fluorescente rouge ou Mito-tracker, lorsque les échantillons sont analysés par microscopie confocale. Malheureusement, BODIPY 493/503 est sensible au photoblanchiment, mais ce processus peut être évité en utilisant un réactif antiquenching pendant l’exposition à la lumière de24.
Pour exécuter le test LFR dans les cellules de levure, ils sont cultivés dans les conditions nutritionnelles souhaitées et parties aliquotes sont retirés à des moments différents. Ensuite, les cellules sont fixées avec du formaldéhyde, qui préserve l’intégrité du LDs pendant des mois quand les cellules sont stockés à 4 ° C. Autres techniques de fixation doivent être évités, surtout ceux à l’aide de méthanol ou l’acétone froid, puisqu’ils conduisent à la dégradation de LDs dans les cellules24. Pour mesurer l’indice de LD, formaldéhyde-correction des cellules sont en suspension dans l’eau pour obtenir une concentration définie. Ensuite, ils sont ajoutés à une solution contenant le fluorophore BODIPY 493/503 piégée par KI, et lorsque le fluorophore pénètre dans la cellule et l’associe avec les LDs, il y a une reprise de la fluorescence. Concomitante à la mesure de la fluorescence (485 nm/510 nm), la concentration des cellules est quantifiée par la mesure de la densité optique à 600 nm. Chaque échantillon est lu quatre fois en ajoutant ultérieur 5 µL d’extraits d’une suspension de cellules de formaldéhyde-correction pour le même bien. Flans de fluorescence et d’absorbance sont acquises avant l’ajout de cellules. La qualité de la fluorescence et les données d’absorbance sont évaluées en déterminant la linéarité des mesures : si r < 0,9, les données sont ignorées. La valeur de r est importante, parce que fondamentalement, l’intensité de fluorescence doit produire une réponse linéaire à des concentrations croissantes de cellule. Si la concentration en cellules est trop élevée, la linéarité est perdue. Le dosage de la LFR fournit une méthode simple, rapide et économique pour sélectionner le phénotype LD souhaité dans les expériences de haut débit. Après avoir sélectionné les conditions souhaitées, le contenu de la LD de cellules individuelles peut être étudié en microscopie confocale, utilisant les mêmes cellules de formaldéhyde-correction teintés avec BODIPY, fournissant une image des LDs dans la cellule. Leurs balises et le contenu SE peuvent maintenant être davantage analysés par chromatographie sur couche mince.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
1. préparation des tampons et Solutions
- Pour préparer 1 L de phosphate buffered saline (PBS, pH 7), dissoudre 8 g de NaCl, 0,2 g de KCl, 1,44 g de Na2HPO4, 0,24 g de KH2PO4 dans 800 mL d’eau distillée. Ajuster le pH à 7.0 avec HCl et puis ajouter l’eau pour un volume final de 1 L. PBS peut être fait comme un 10 x solution mère et stocké à température ambiante.
- Pour préparer 10 mL de solution de fixation, ajouter 1 mL de 37 % de formaldéhyde dans 9 mL de PBS pour atteindre une concentration finale de 3,7 %. Préparer cette solution juste avant utilisation.
ATTENTION : Utilisez des gants pour manipuler la solution de formaldéhyde. - Pour préparer la solution de piégeage (500 mM), dissoudre 8,3 g de KI dans 100 mL d’eau distillée. Préparer cette solution avant de l’utiliser et conserver à température ambiante.
- Pour préparer la solution mère de BODIPY 10 mM, dissoudre 10 mg de BODIPY 493/503 dans 3,8 mL du diméthylsulfoxyde (DMSO). Gardez 100 µL d’extraits dans l’obscurité à-70 ° C.
- Pour préparer la solution de BODIPY 5 µM-refroidissant, ajouter 1 µL de 10 mM BODIPY 493/503 à 2 mL de 500 mM trempe solution. Pour le dosage de la LFR, il faut une concentration finale de 5 µM de BODIPY.
- Pour préparer la solution minérale, ajouter 0,06 g H3BO3, 0,14 g MnCl2-4 H2O, 0,4 g de ZnCl2, 0,04 g de Na2MoO4-2 H2O, 0,1 g de FeCl3-6 H2O et 0,4 g de CuSO 4-5 H2O à 1 L d’eau distillée.
- Pour préparer la solution de sel, ajouter 16 g de KH2PO4, 4 g de Na2donc4, 8 g de KCl, 2 g de MgSO4, 1 g de CaCl2et 8 mL de solution minérale à 1 L d’eau distillée.
- Pour préparer le milieu minimal sans une source d’azote pour U. maydis FB2 (a2b2), ajouter 10 g de glucose et 62,5 mL de solution de sel pour 1 L d’eau distillée, selon Holliday, et al. 31. ajuster le pH à 7.0, puis distribuer 100 mL des médias dans des flacons de 250 mL et les stériliser. Stériliser à l’autoclave pendant 20 min à 15 lb/po2 (1,05 kg/cm2) sur le cycle de liquide ou de filtre.
- Pour préparer le milieu de dextrose de peptone de levure (DPJ), ajouter 5 g de levure extrait, 2,5 g de peptone, et 5 g de glucose à 1 L d’eau distillée. Verser 100 mL de la solution dans des flacons de 250 mL et les stériliser. Stériliser à l’autoclave pendant 20 min à 15 lb/po2 (1,05 kg/cm2) sur le cycle de liquide ou de filtre.
2. la culture État et Fixation de la cellule
NOTE : Préserver la structure des LDs en fixant les cellules dès que possible. La fixation peut se faire dans des microtubes à centrifuger. Les cellules fixes peuvent être conservés à 4 ° C pendant jusqu'à un mois si la déshydratation est évitée en laissant une mince couche d’eau.
- La croissance de cellules d’u. maydis dans des conditions de culture pertinentes pour l’étude. Commencer la culture avec une initiale de l’OD600 de 0,05 (1,15 × 10⁶ cellules / mL). Incuber les cellules à 28 ° C, 180 tr/min pendant 24 h. Une OD600 des 1 correspond à 2,3 × 10⁷ cellules / mL.
- Au fois, retirer une portion des cellules. Pour U. maydis, retirer 5 mL toutes les 2 h au cours des 8 premières heures. Après 8 h de croissance, parties aliquotes de 2 mL suffisent.
- Mesurer la densité optique à 600 nm de chaque aliquote.
- Centrifuger la suspension cellulaire à 14 000 x g pendant 1 min à 4 ° C à l’aide d’une centrifugeuse de table. Jeter le surnageant.
- Suspendre le culot de cellules dans 1 mL de tampon de 3,7 % de PBS-formaldéhyde. Incuber les cellules à température ambiante pendant 15 minutes.
- Après l’incubation, centrifuger la suspension cellulaire à 14 000 x g pendant 1 min à 4 ° C. Jeter le surnageant.
- Laver le culot de cellules deux fois avec un même volume d’eau distillée (1 mL). Centrifuger la suspension cellulaire à 14 000 x g pendant 1 min à 4 ° C. Jeter le surnageant après chaque lavage.
- Ajuster le culot cellulaire à 5 OD600 (1,15 x 10⁸ cellules / mL) avec de l’eau (équation 1) distillée.
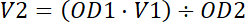 Équation 1.
- Conserver l’échantillon à 4 ° C jusqu'à son utilisation.
3. liquide Fluorescence Recovery Assay (LFR)
- Allumez le spectrophotomètre et ouvrez le logiciel Skanlt. Cliquez sur nouvelle SESSION, puis choisissez Démarrer puis Varioskan Lux. Sélectionnez protocole dans l’arborescence de la session, entrez les paramètres pour les longueurs d’onde de fluorescence (excitation 485 nm/émission 510 nm ; densité optique 600 nm) et choisissez automatique photomultiplicateur gain. Pour excitation de bande passante, sélectionnez 12 nm. Dans l’optique, sélectionnez haut (excitation de l’échantillon provient de la partie supérieure du puits).
- Entrer dans une agitation douce et continue (300 tr/min). Sélectionnez Exécuter plaque OUTet PAUSE jusqu'à ce que l’ACTION de l’utilisateur (temps utilisé pour l’ajout de l’échantillon dans les puits). Répéter le protocole cinq fois. Cliquez sur Enregistrer et écrire un nom pour la session sur le Champ de nom de SESSION. Le protocole est maintenant prêt pour les analyses d’échantillons.
- Ajouter 200 µL de la BODIPY 5 µM - trempé solution dans chaque puits d’une plaque de 96 fond bien noir-clair.
- Placer la plaque à l’intérieur de la chambre de spectrophotomètre et incuber 5 min à 30 ° C. De ce point, protéger la plaque de la lumière autant que possible.
- Cliquez sur le bouton Démarrer et lisez la fluorescence (excitation 485/émission 510) et l' OD600 correspondant pour les blancs.
- Ajouter 5 µL de la suspension cellulaire fixe de formaldéhyde dans les puits pendant le temps de pause. Mélanger soigneusement les échantillons à l’aide de la pipette. Mettre la plaque à l’intérieur du spectrophotomètre et cliquez sur Continuer. Ensuite, les échantillons seront traitées selon le protocole conçu au-dessus.
- Répétez les trois ajouts successifs de 5 µL de suspension cellulaire. Assurez-vous que les cellules ne donnent pas de précipitations. (Figure 1).
4. calcul de l’Index LD
- Pour chaque échantillon dans la microplaque, établir une courbe de fluorescence et absorbance contre le volume de chaque ajout successifs (5 points, y compris le blanc). Dans cette étude, utilisez le logiciel Microsoft Excel pour les calculs. Pour tracer les données, entrez le volume, de fluorescence et données d’absorbance dans le premier, deuxième et troisième colonne de la feuille de données, respectivement. Puis, sélectionnez l’ensemble des données avec le curseur, cliquez sur Insérer et sélectionnez des nuages de points (XY).
- Sélectionnez les points pour chaque ligne dans le graphique et insérer la respectifs de Courbe de tendance avec la case SHOW équation activée. Notez les valeurs des pistes des deux droites, conformément à l’équation 2 :
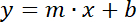 Équation 2
Où y = la fluorescence ou la densité optique, x = volume de l’échantillon (0, 5, 10, 15, 20 µL), m = pente de la fluorescence ou ligne de densité optique et b = ordonnée à l’origine. - Diviser la pente de la fluorescence de la pente de la courbe de densité optique pour obtenir l’index de la LD, équation 3.
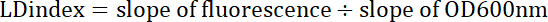 Équation 3
L’index LD correspond au quotient de la fluorescence et pistes de densité optique.
5. données analyse de la qualité
- Calculer le coefficient de corrélation de chaque ligne droite : cliquez sur l' Assistant fonction (fx) et choisissez CORREL. Si r < 0,9, ignorer les données et répéter la lecture. Si r ≥ 0,9, lectures est fiable.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
RAL, avec BODIPY 493/503 comme la sonde fluorescente est une méthode simple et fiable pour étudier l’accumulation dynamique de LDs dans U. maydis, peu importe les conditions de croissance. Lorsque les cellules sont cultivées en milieu YPD, il y avait une augmentation de l’indice de LD durant la phase exponentielle, suivie d’un déclin dans la phase stationnaire (Figure 2 a). En revanche, chez les cellules cultivées sous azotée, il y avait une augmenta...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
LFR est une nouvelle méthode qui a été appliquée pour la première fois d’étudier le métabolisme lipidique chez S. cerevisiae et plus tard il a été mis en place dans U. maydis20,21. Bien que l’index LD ne donne pas une valeur absolue des balises accumulés dans les cellules, il fournit une idée rapide de la teneur en lipides des cellules, et l’interprétation des données est simple lorsqu’on compare les index de LD dans deux ou plusieurs des condit...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs n’ont rien à la divulgation
Remerciements
Ce travail a été soutenu par des subventions Instituto Politécnico Nacional-Secretaria de Investigación y Posgrado (IPN-SIP-20170864), Programa de Apoyo a Proyectos de Investigación, e Innovación Tecnológica (PAPIIT IN222117)-Universidad Nacional Autónoma de México () UNAM) et le Consejo Nacional de Ciencia y Tecnología (CONACyT 254904-JPP et 256520-GGS). Fundação de Amparo un Pesquisa Rio de Janeiro (FAPERJ-Cientistas do Nosso Estado : E 26/103.353/2011). Nous avons grâce à : QFB. Oscar Iván Luqueño Bocardo pour l’aperçu schématique. Nous remercions le Dr Miguel Tapia Rodríguez pour l’aide précieuse à la microscopie confocale de LDs. Nous tenons à remercier le Dr Bruno Bozaquel Morais pour son travail de pionnier dans le développement de la technique chez S. cerevisiae qui nous adapté pour U. maydis.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Spectrophotomètre | Varioskan Lux multimode microplaque reade | D5879 | Filtre 493/503 ou détecteur monochromateur |
| Plaque costar | Corning Inc. | 3615 | 96 puits à paroi noire/fond transparent |
| Plaque costar | Corning Inc | 3598 | Plaque de culture cellulaire à 96 puits costar |
| BODIPY 493/503 | Invitrogen/ Thermofisher | D3922 | 4,4-difluoro-1,3,5,7,8-pentaméthyl-4-bora-3a,4a-diaza-s-indacéne |
| Solution de formaldéhyde | Sigma Aldrich | 252549 | réactif ACS, 37 % en poids dans H2O, contient 10 à 15 % de méthanol pour empêcher la polymérisation |
| Iodure de potassium | Sigma Aldrich | 60399 | BioUltra, &ge ; 99,5 % (AT) |
| FB2 Ustilago maydis | ATCC | 201384 | Levure basidiomycète |
| Chlorure de sodium | Sigma Aldrich | 746398 | Réactif ACS, sel inorganique |
| Phosphate de potassium monobasique | Sigma Aldrich | P0662 | Réactif ACS |
| Sélectionnez Extrait de levure | Sigma Aldrich | Y100 | Mélange d’acides aministes, de peptides, de substances hydrosolubles, de vitamines et de glucides pour milieux de culture |
| N-Z case plus | Sigma aldrich | N4642 | Hydrolysat enzymatique de caséine de lait de vache |
| Glucose | Sigma Aldrich | G-8270 | D (+) glucose |
| Skäker flacon | Pirex | CLS4450250-6EA | Verre borosiicate |
| Shaker | SEV Mé ; xico | INO650V-7 | Agitateur orbital |
| Table de centrifugation | Eppendorf | 5415C | Centrifugeuse |
| Microtubes | Sigma Aldrich | Z606340 | Eppendorf |
| Pointes de pipette | Axygen scientific | T-200-Y | Pointes de pipette universelles avec extrémité biseautée, 200 microlitres, non stérile |
| Pipette mLine | Biohit | 725130 | 8 canaux, plage de volume 5-100 uL |
Références
- Guo, Y., Cordes, K. R., Farese, R. V., Walther, T. C. Lipid droplets at a glance. Journal of Cell Science. 122 (6), 749-752 (2009).
- Welte, M. A. Expanding roles for lipid droplets. Current Biology. 25 (11), R470-R481 (2015).
- Sestric, R., Munch, G., Cicek, N., Sparling, R., Levin, D. B. Growth and neutral lipid synthesis by Yarrowia lipolytica on various carbon substrates under nutrient-sufficient and nutrient-limited conditions. Bioresource Technology. 164, 41-46 (2014).
- Raimondi, S., et al. Getting lipids from glycerol: new perspectives on biotechnological exploitation of Candida freyschussii. Microbial Cell Factories. 13, 83(2014).
- Cescut, J., Fillaudeau, L., Molina-Jouve, C., Uribelarrea, J. L. Carbon accumulation in Rhodotorula glutinis induced by nitrogen limitation. Biotechnology for Biofuels. 7, 164(2014).
- Galafassi, S., et al. Lipid production for second generation biodiesel by the oleaginous yeast Rhodotorula graminis. Bioresource Technology. 111, 398-403 (2012).
- Kot, A. M., Blazejak, S., Kurcz, A., Gientka, I., Kieliszek, M. Rhodotorula glutinis-potential source of lipids, carotenoids, and enzymes for use in industries. Applied Microbiology and Biotechnology. 100 (14), 6103-6117 (2016).
- Rakicka, M., Lazar, Z., Dulermo, T., Fickers, P., Nicaud, J. M. Lipid production by the oleaginous yeast Yarrowia lipolytica using industrial by-products under different culture conditions. Biotechnology for Biofuels. 8, (2015).
- Zhu, Z. W., et al. Dynamics of the Lipid Droplet Proteome of the Oleaginous Yeast Rhodosporidium toruloides. Eukaryotic Cell. 14 (3), 252-264 (2015).
- Kolouchova, I., Mat'atkova, O., Sigler, K., Masak, J., Rezanka, T. Production of Palmitoleic and Linoleic Acid in Oleaginous and Nonoleaginous Yeast Biomass. International Journal of Analytical Chemistry. , (2016).
- Radulovic, M., et al. The emergence of lipid droplets in yeast: current status and experimental approaches. Current Genetics. 59 (4), 231-242 (2013).
- Takahashi, Y., et al. Perilipin-Mediated Lipid Droplet Formation in Adipocytes Promotes Sterol Regulatory Element-Binding Protein-1 Processing and Triacylglyceride Accumulation. Plos One. 8 (5), e64605(2013).
- Thiam, A. R., Farese Jr, R. V., Walther, T. C. The biophysics and cell biology of lipid droplets. Nature Reviews Molecular Cell Biology. 14 (12), 775-786 (2013).
- Penno, A., Hackenbroich, G., Thiele, C. Phospholipids and lipid droplets. Biochimica et Biophysica Acta. 1831 (3), 589-594 (2013).
- Ageitos, J. M., Vallejo, J. A., Veiga-Crespo, P., Villa, T. G. Oily yeasts as oleaginous cell factories. Applied Microbiology and Biotechnology. 90 (4), 1219-1227 (2011).
- Athenstaedt, K., Daum, G. The life cycle of neutral lipids: synthesis, storage and degradation. Cellular and Molecular Life Sciences. 63 (12), 1355-1369 (2006).
- Marshall, L. L., Stimpson, S. E., Hyland, R., Coorssen, J. R., Myers, S. J. Increased lipid droplet accumulation associated with a peripheral sensory neuropathy. Journal of Biological Chemistry. 7 (2), 67-76 (2014).
- Filipe, A., McLauchlan, J. Hepatitis C virus and lipid droplets: finding a niche. Trends in Molecular Medicine. 21 (1), 34-42 (2015).
- Greenberg, A. S., et al. The role of lipid droplets in metabolic disease in rodents and humans. Journal of Clinical Investigation. 121 (6), 2102-2110 (2011).
- Aguilar, L. R., et al. Lipid droplets accumulation and other biochemical changes induced in the fungal pathogen Ustilago maydis under nitrogen-starvation. Archives of Microbiology. , (2017).
- Bozaquel-Morais, B. L., Madeira, J. B., Maya-Monteiro, C. M., Masuda, C. A., Montero-Lomeli, M. A new fluorescence-based method identifies protein phosphatases regulating lipid droplet metabolism. PLoS One. 5 (10), e13692(2010).
- Madeira, J. B., et al. TORC1 Inhibition Induces Lipid Droplet Replenishment in Yeast. Molecular and Cellular Biology. 35 (4), 737-746 (2015).
- Maya-Monteiro, C. M., et al. Leptin induces macrophage lipid body formation by a phosphatidylinositol 3-kinase- and mammalian target of rapamycin-dependent mechanism. Journal of Biological Chemistry. 283 (4), 2203-2210 (2008).
- Listenberger, L. L., Brown, D. A. Current Protocols in Cell Biology. , John Wiley & Sons, Inc. (2001).
- Jump, D. B., Torres-Gonzalez, M., Olson, L. K. Soraphen A, an inhibitor of acetyl CoA carboxylase activity, interferes with fatty acid elongation. Biochemical Pharmacology. 81 (5), 649-660 (2011).
- Hobro, A. J., Smith, N. I. An evaluation of fixation methods: Spatial and compositional cellular changes observed by Raman imaging. Vibrational Spectroscopy. 91, 31-45 (2017).
- Chen, Y. T., Wan, L., Zhang, D. P., Bian, Y. Z., Jiang, J. Z. Modulation of the spectroscopic property of Bodipy derivates through tuning the molecular configuration. Photochemical & Photobiological Sciences. 10 (6), 1030-1038 (2011).
- Pagac, M., et al. SEIPIN Regulates Lipid Droplet Expansion and Adipocyte Development by Modulating the Activity of Glycerol-3-phosphate Acyltransferase. Cell Reports. 17 (6), 1546-1559 (2016).
- Qiu, B., Simon, M. C. BODIPY 493/503 Staining of Neutral Lipid Droplets for Microscopy and Quantification by Flow Cytometry. Bio-protocol. 6 (17), (2016).
- Rumin, J., et al. The use of fluorescent Nile red and BODIPY for lipid measurement in microalgae. Biotechnology for Biofuels. 8, 42(2015).
- Holliday, R. Ustilago maydis. Handbook of genetics. King, R. , Plenum. New York. 575-595 (1974).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
