Ce manuscrit décrit un protocole simple pour l’isolement des artérioles de la rétine de rat qui peut être utilisé dans, calcium imagerie et pression myographie des études électrophysiologiques.
Article de méthode
Isolement des artérioles rétiniennes Ex Vivo études de physiologie cellulaire
* These authors contributed equally
Dans cet article
Résumé
Résumé
La rétine est un tissu hautement métaboliquement actif nécessitant une irrigation sanguine importante. La circulation rétinienne soutient la rétine interne, tandis que les navires choroïdienne fournissent les photorécepteurs. Altérations rétinienne perfusion contribuer aux nombreux troubles vue en danger, y compris la rétinopathie diabétique, occlusion de la veine glaucome et la direction générale de la rétine. Comprendre les mécanismes moléculaires impliqués dans le contrôle de la circulation sanguine à travers la rétine, et comment elles sont modifiées au cours de la maladie oculaire pourrait conduire à l’identification de nouvelles cibles pour le traitement de ces conditions. Artérioles rétiniennes sont les vaisseaux de résistance principaux de la rétine et par conséquent, jouent un rôle clé dans la régulation de rétine hémodynamique à travers des changements de diamètre luminal. Ces dernières années, nous avons développé des méthodes pour isoler les artérioles de la rétine de rat qui conviennent à un large éventail d’applications, y compris les études de physiologie cellulaire. Cette préparation a déjà commencé à produire de nouvelles connaissances sur comment le débit sanguin est contrôlé dans la rétine et nous a permis d’identifier certaines des principaux changements qui se produisent au cours de la maladie oculaire. Dans cet article, nous décrit les méthodes pour l’isolement des artérioles rétiniennes rat et comprennent des protocoles pour leur utilisation en électrophysiologie patch clamp, imagerie calcique et études myographie de pression. Ces bateaux se prêtent également destiné à la PCR-, western blot et immunohistochimie dotés d’études.
Introduction
Comprendre comment contrôle-t-on l’irrigation sanguine de la rétine est un objectif important, étant donné que le débit sanguin anormal a été impliqué dans la pathogénie d’une variété de vue en danger maladies de la rétine1,2,3, 4. La circulation rétinienne, qui approvisionne les neurones de la rétine internes et les cellules gliales, conventionnè fin artère, avec tout le sang des artères rétiniennes et des artérioles en passant par les capillaires aux veinules rétiniennes et enfin les veines5. La circulation sanguine de la rétine est réglementée par le ton des artères rétiniennes et des artérioles ainsi que l’activité contractile de la péricytes situés sur les parois des capillaires rétiniens et veinules post capillaire6,7, 8. le contrôle du tonus vasculaire rétinienne est complex et est modulé par une série d’apports provenant du système circulatoire et le tissu rétinien environnant, y compris les gaz du sang circulant les molécules et les hormones, et substances vasoactives libéré de la rétinienne vasculaire endothélium et macroglia9,10,11. Les artérioles rétiniennes sont les petites branches artérielles de la rétine et sont composées d’une seule couche de cellules musculaires lisses vasculaires et une doublure intérieure de disposés longitudinalement les cellules endothéliales12,13, 14. ces vaisseaux forment le principal site de la résistance vasculaire dans la circulation rétinienne et jouent donc un rôle important dans le contrôle local de débit sanguin rétinien. Artérioles rétiniennes régulent le flux sanguin capillaire dans la rétine en dilatant ou en resserrant leur diamètre luminal, médiée par des changements dans le muscle lisse vasculaire contractilité10,15,16. La compréhension des mécanismes moléculaires par le biais de laquelle rétinienne réglementent les artérioles rétinienne perfusion nécessite donc préparations où les cellules des muscles lisses des artérioles peuvent être consultés et étudiés dans des conditions aussi près de physiologiques que possible.
Ex vivo des préparations des vaisseaux rétiniens isolés permettent d’accéder aux cellules musculaires lisses vasculaires, tout en conservant leur fonctionnalité et leur interconnectivité avec l’endothélium sous-jacent. La plupart des études à ce jour à l’aide de vaisseaux isolés ont mis l’accent sur les gros vaisseaux artériels bovin ou porcin (60 à 150 µm). Ceux-ci peuvent être montés en fil disponible dans le commerce ou systèmes myographe pression pour permettre l’interrogatoire pharmacologique du muscle lisse vasculaire cellule contractile mécanismes17,18. Ces préparations ont grandement contribué à notre connaissance de la physiologie vasculaire rétinienne dans des conditions normales. Peu d’études ont utilisé des artérioles rétiniennes isolés de petits animaux de laboratoire comme leur plus petit diamètre (~ 8-45 µm) empêche leur utilisation dans les systèmes conventionnels de myographie19,20,21,22. Un avantage important, toutefois, de l’utilisation de navires de petits animaux de laboratoire est la grande disponibilité de modèles de maladies génétiquement modifiées, transgéniques et rétiniennes. Petits animaux de laboratoire sont également plus propices pour des études in vivo intervention.
Nous décrivons ici les protocoles simples pour isoler et canulant artérioles rétiniennes rat pour expériences myographie de pression. Ca2 + imagerie et électrophysiologie protocoles à l’aide de ces navires sont également détaillés. Ces peuvent encore donner un aperçu de la réglementation de la contractilité du muscle lisse vasculaire et la circulation sanguine de la rétine.
Protocole
Toutes les expériences décrites ici ont été réalisés conformément aux directives figurant dans la Loi sur les animaux UK (procédures scientifiques) de 1986 et ont été approuvées par la Reine bien-être Animal de l’Université de Belfast et organe d’examen éthique.
1. isolement des artérioles rétiniennes
Remarque : Le protocole suivant est utilisé pour isoler les artérioles rétiniennes. Cette méthode est optimisée pour les artérioles rétiniennes de rat, mais peut être utilisée avec la rétine de souris. Cependant, le rendement des vaisseaux, est inférieur lorsque vous utilisez la souris.
- Constituent une solution de faible Ca2 + contenant Hanks (LCH), comme illustré dans le tableau 1.
NOTE : Cette solution peut être conservée pendant 3 jours à 4 ° C (lorsque stockées au format LCH, s’assurer qu’il s’équilibre à la température ambiante et le pH est correct avant de l’utiliser). - Assembler les équipements suivants ayant précédé le prélèvement de tissu pour s’assurer de microdissection rapide de la rétine : dentelée, pinces, ciseaux courbes, lame plat (revêtement silicone Pétri), unique bordée de dissection, 2 séries de (blunt) 1 verre pince pipette Pasteur (feu poli d’un embout lisse mais pas étroit), 1 pipette en plastique jetable (avec pointe paré pour augmenter l’ouverture à ~ 5-7 mm), 1 verre rond bas tube à essai (5 mL) et le titulaire. Décanter environ 50 mL de la LCH dans un bécher de verre et de préparer un deuxième bécher de décanter les déchets liquides.
Remarque : Consultez la Table des matières pour les spécifications et Détails du fabricant. - Euthanasier le rat à l’aide de CO2 , puis par ponction cardiaque à exsanguinate (éviter la dislocation cervicale ou une commotion cérébrale car il peuvent endommager les vaisseaux sanguins dans le œil). Rétraction des paupières avec une pince dentelée, puis utilisez les ciseaux courbes pour couper autour des muscles orbitaux et par l’intermédiaire du nerf optique. Extraire doucement les yeux de l’orbite en prenant soin de couper à travers toutes les pièces jointes restantes avec des ciseaux.
- Placer les yeux plongés dans la solution de LCH sur le plat de dissection (yeux peut être transportés sur la glace dans une solution de LCH si nécessaire). Utilisez un jeu de pinces émoussé pour ancrer l’yeux sur le plat en maintenant les attaches musculaires orbitale ou le nerf optique ; Assurez-vous que le point d’ancrage est aussi proche que possible de la sclère pour stabiliser le œil.
- Avec la lame, coupez à travers la cornée le long de l' ora serrata et retirez la lentille en appuyant doucement sur la sclère avec une pince.
- Couper les bonnettes en deux symétriquement par l’intermédiaire du disque optique. À l’aide de fermé pince doucement « brosse » sur les rétines depuis les deux moitiés de le œilleton en prenant soin d’enlever toutes les pièces jointes restantes au disque optique. Répétez l’opération avec le deuxième œil et transférer les rétines disséqués dans le tube à essai à l’aide de la pipette en plastique et une petite goutte de milieu de LCH.
- À l’aide de la pipette en plastique remplir le tube à essai avec LCH à ~ 5 mL et permettre les rétines se déposer au fond.
- Laver le tissu environ 3 fois, en enlevant ~ 4 mL de solution à partir du tube et en ajoutant des frais LCH à l’aide de la pipette en plastique. Le cas échéant, supprimer les tissus étrangers tels que les ligaments suspenseurs, de vitré et de poils.
- Lavez l’intérieur de la pipette Pasteur en verre (pointe polie) avec LCH pour empêcher le tissu de coller à la pipette. Utiliser la même pipette retirer environ 4 mL de solution de l’éprouvette. Ajoutez ensuite environ 2 mL de frais LCH.
- Doucement se dissocier (broyer) les rétines en dessinant le tissu par l’intermédiaire de la pointe du verre Pipetter lentement et expulsez le contenu dans le tube à essai. Remarque, essayez de ne pas introduire des bulles à cette étape.
- Répétez l’étape 1.10 jusqu'à ce que la rétine est cassée vers le haut à une taille d’environ 2-3 mm2.
- Lavez l’intérieur de la pipette avec environ 2 mL de LCH et expulsez cela dans le tube à essai. Laisser le contenu s’installer vers le bas pendant 5-10 min.
- Répéter le processus de trituration décrit dans 1.10-1.12 avec un peu plus de force, jusqu'à ce que les morceaux de tissu sont d’environ 1 mm2 en taille. Encore une fois, laissez le tissu se contenter de 5-10 min.
- Répétez les étapes 1.10-1.12 une troisième fois avec plus de force jusqu'à ce que le contenu est entièrement homogénéisé et ne restent aucuns morceaux de la rétine (la solution doit devenir laiteuse en apparence).
NOTE : Cette technique permettra d’obtenir jusqu'à 8 segments d’arteriolare (relativement libres d’entourant neuropile et avec quelques branches demeurent intactes) par isolement mesure 8-45 µm de diamètre et 200-2500 µm de longueur. - Transférer une petite quantité de l’échantillon isolé dans une chambre d’enregistrement physiologiques ou ajouter des colorants fluorescents pour la mesure de la concentration intracellulaire de Ca2 + ([Ca2 +]i; Voir la section 3). Disposer des restes de le œilleton et solution supprimées lors du processus d’isolement selon les règles locales sur le traitement des déchets d’origine animale.
Remarque : Il est conseillé d’expérimenter sur les bateaux immédiatement après l’isolement, isolat excédentaire peut être stocké à 4 ° C pendant 8 h.
2. artériolaire pression myographie
NOTE : La pression artériolaire myographie s’effectue comme suit en utilisant les équipements décrits dans la Figure 1 a, B et la Table des matières.
- Une prise aliquote d’homogénat de vaisseaux rétiniens (1 à 2 mL ; isolé conformément à l’article 1) à une chambre d’enregistrement physiologiques (partiellement rempli de nominalement solution Ca2 +gratuit Hanks ; 0Ca2 + Hanks'; voir tableau 1) monté sur la scène d’un microscope inversé. Laissez les vaisseaux à se déposent au fond de la chambre d’enregistrement pendant au moins 5 min avant l’expérimentation.
- Balayer visuellement la chambre d’enregistrement pour identifier les artérioles > 200 µm de longueur et qui possèdent une extrémité ouverte à travers laquelle le bateau peut être canulé (identification du type de navire est approfondie dans la section résultats). Positionner le navire au centre du champ de vision. Si aucun des navires adaptés ne sont présents, transférer une autre partie aliquote de l’homogénat de navire dans la chambre d’enregistrement selon l’étape 2.1.
- Fixer une extrémité du navire à l’aide d’une pince fine et un feuillet de fil de tungstène petit (75 µm de diamètre et ~ 2-4 mm de longueur) placé sur le navire (voir la Figure 1(i)). Pour ce faire tenir le fil dans la pince et placer la pince audessus de la chambre d’enregistrement.
- Identifier l’ombre correspondante de la pince sous le microscope, abaissez la pince dans le bain jusqu'à ce que le fil devient apparent. Positionner le fil sur le µm de bateau environ 200 de l’extrémité ouverte et déposez le fil perpendiculaire à l’axe longitudinal du navire.
Remarque : Le poids du fil tungstène est suffisant pour bloquer le navire distalement arrêter flux de contenu luminal pendant la canulation et pressurisation.
- Identifier l’ombre correspondante de la pince sous le microscope, abaissez la pince dans le bain jusqu'à ce que le fil devient apparent. Positionner le fil sur le µm de bateau environ 200 de l’extrémité ouverte et déposez le fil perpendiculaire à l’axe longitudinal du navire.
- Déplacer l’artériole dans une position appropriée au sein de la chambre d’enregistrement, telle qu’elle se trouve horizontalement à travers le bain avec l’extrémité ouverte conformément à la canule de pressurisation (voir la Figure 1(ii-iv)). Le faire en poussant doucement le bordereau de fil de tungstène occlusion avec une section supplémentaire de fil qui s’est tenue au sein de la pince ; ne pas toucher l’artériole car il adhérera irréversiblement à la pince.
- Le cas échéant (pour les segments de l’artériole long), ajouter feuillets de fil de tungstène supplémentaire sur le navire tel que la distance entre les extrémités occluses et ouvertes du navire est pas plus de 200 µm ; Cela aide à prévenir l’artériole déplacement hors du champ de vision à la pressurisation. Si le bateau a des branches latérales, ceux-ci devraient également être obstrués par bordereaux de fil de tungstène supplémentaire. Si une branche latérale ne peut pas être obstruée, jeter le navire.
- Perfuse la chambre avec 0Ca2 + Hanks à 37 ° C pour enlever les tissus rétiniens superflues et pour chauffer le bain à une température physiologique.
NOTE : Un système de chauffage standard bain gravitaire perfusion et en ligne peut être utilisé à cet effet (voir Figure 1 a). 0Ca2 + Hanks' est utilisé pour faciliter la procédure de canulation, depuis le retrait de l’autorité de certification externe2 + veille à ce que les artérioles restent dilatées. - Fabriquer des canules de pressurisation de le verre borosilicaté capillaires (embout diamètre ~ 3 à 10 µm selon le diamètre du vaisseau à être canulé ; petits navires nécessitent des canules plus restreint ; Voir la Table des matières) en utilisant un extracteur de microélectrodes et remblayer avec une solution 0Ca2 + Hanks. S’assurer que la tige de la canule est conique doucement vers l’extrémité pour faciliter la canulation.
- Monter la canule dans un porte-pipette jointe à une seringue de 10 mL via un connecteur en Y et un robinet 3 voies ; Cela sert à pressuriser le système, la pression étant enregistrées à l’aide d’un manomètre attaché à l’autre côté-bras du connecteur en Y (voir Figure 1 b).
Remarque : Une pipette de « helper » est nécessaire pour aider au processus de canulation. Fabriquer la pipette dans un capillaire de verre borosilicate a tiré sur un extracteur microélectrode à un diamètre de 0,5 - 2 µm. fortement feu polonais la pipette (souvent jusqu'à la fermeture) en utilisant une microforge. - Placez soigneusement la pipette d’assistance perpendiculairement à l’axe du navire près de l’extrémité ouverte à l’aide d’un manipulateur mécanique 3 axes (voir Figure 1). Placez la pipette d’assistance juste au-dessus du navire, mais ne pas toucher elle.
- Placez la pipette de la canule à l’extrémité ouverte du bateau (voir Figure 1 et 2 a(i)) à l’aide d’un micromanipulateur fin ; Positionner la pointe immédiatement adjacente à l’ouverture, tel qu’évalué en ajustant le plan de mise au point sur le microscope (à 20 X). Quand les deux extrémités du navire et l’extrémité de la canule sont en discussion en même temps la canule est bien positionnée pour cannulation (voir la Figure 2 a(ii)).
- La canule de pressurisation s’avancer dans l’ouverture du navire en utilisant les contrôles de l’axe des abscisses de la fin micromanipulateur (voir la Figure 2 a(iii)). Évaluer le succès de canulation en déplaçant la canule le long de l’axe des ordonnées. Si la canule reste à bord du navire, c’est avec succès canulée (voir Figure 2 a(iv)). Si la canule se déplace à l’extérieur du navire, la canule est susceptible d’être au-dessus du navire ; dans l’affirmative, répétez étape 2.10-2.11 avec la canule à un plan inférieur dans l’axe z.
- Après canulation réussie doucement la pipette d’assistance sur le navire pour retenir l’artériole. Guider la paroi artériolaire sur la canule de pressurisation avec la pipette d’assistance, en même temps que la pipette de canulation est avancée davantage dans la lumière du vaisseau à une distance d’environ 30 à 50 µm (voir la Figure 2 a(v, vi)).
Remarque : Cette procédure nécessite un mouvement simultané, contrôlé de deux manipulateurs (pipette d’assistance vers la canule, tandis que la canule s’installe dans la lumière du vaisseau) et nécessitera une vaste pratique d’atteindre un taux de réussite élevé. - Mettre en place la solution bain Hanks normale contenant Ca2 + 2 mM (voir tableau 1) à 37 ° C. En règle générale, cela entraîne un léger rétrécissement de l’artériole et la formation d’un joint étanche autour de la canule de pressurisation. La pipette d’assistance peut alors être déplacée loin du navire.
- Permettre une fermeture hermétique à développer pendant 15 min. Voir le vaisseau en utilisant une caméra USB (et logiciel d’acquisition image) attaché au microscope et ajuster la mise au point pour maximiser le contraste entre les limites de navire et les espaces extérieurs et intraluminal (voir Figure 2 b). Image du navire à 0,5 - 5 images/s.
- Après 1 min d’enregistrement à 0 mm Hg, augmenter la pression intraluminale au niveau souhaité en fermant le robinet 3 voies, attaché à la canule de pressurisation (voir Figure 1 b) et appliquer une petite quantité de pression positive au système au moyen de la seringue. Observez la pression changent sur le manomètre.
Remarque : La pression peut être ajoutée de façon pas sage à 100 mmHg ou une valeur par exemple 40 mmHg (se rapprochant la pression artériolaire rétinien en vivo)23. Le navire devrait rapidement dilater confirmant la canulation réussie. Veuillez noter que la vasoconstriction induite par la pression (c’est à dire, la réponse myogénique) développera par la suite sur une période de 15 min, mais à cause de la petite taille de ces navires, ce n'est pas forcément visuellement détectable. - Surveillez attentivement le navire pendant la pressurisation initiale des fuites évidentes. Sources de fuite peuvent émaner de branches latérales clivées ou étanchéité insuffisante de la canule à l’intérieur de l’artériole.
- Attention contenu intraluminal quitter le navire. Des fuites plus petits, moins évidents peuvent apparaître au fil du temps comme une chute de pression sur le manomètre. Si possible, bloquer l’ouverture avec feuillets de fil de tungstène supplémentaire prenant soin de ne pas pour déranger la canule. Exclure les préparations avec de fuite évidente de l’analyse.
- Appliquer le médicament d’abluminally d’intérêt pour le navire avant ou après, pressurisation 15 min selon les objectifs de l’expérience (le premier permet des effets sur le développement du tonus myogénique à déterminer, tandis que ce dernier permet l’analyse des effets sur l’état d’équilibre tonus myogénique). Un système typique est illustré dans la Figure 3 a.
- Placer la prise de livraison perpendiculaire à la partie de bâtiment d’intérêt (comme illustré dans la Figure 1) à une distance ~ 500 µm loin du navire d’intérêt en prenant soin de s’assurer que la prise soit optimale obliques au superfuse entièrement la zone (voir Figure 3 b). S’assurer que les changements en perfusion ne dérangent pas physiquement le navire.
- À l’issue d’une expérience, appliquer une solution de 0Ca2 + Hanks' contenant 10 µM wortmannin (inhibiteur de kinase de la chaîne légère de la myosine) pour dilater au maximum le navire afin de déterminer le diamètre passif.
Remarque : La résistance du joint canulation peut être testée à l’issue de l’expérience en augmentant la pression intraluminale à > 100 mm Hg. La majorité des bateaux resteront annexée même à cette haute pression, ce qui indique une bonne étanchéité. - Effectuer des analyses hors ligne à l’aide de détection de bord pour suivre les changements dans le diamètre artériolaire (voir Table des matières pour le logiciel suggéré). Normaliser le diamètre de l’artériole au diamètre passif aux fins de comparaison entre les navires.
3. Ca2 + imagerie
Remarque : Les artérioles rétiniennes isolés sont préparés pour conventionnel (microfluorimétrie) et confocale Ca2 + imagerie comme suit (en utilisant les équipements décrits dans la Table des matières).
- Préparer des homogénats rétiniennes dans une éprouvette de verre de 5 mL tel que décrit à l’article 1. Ajouter à 1 mL d’homogénat rétinienne Fura-02:00 (microfluormetric Ca2 + enregistrement) ou Fluo-04:00 (Ca2 + l’imagerie confocale) pour donner une concentration finale de 5 µM (protéger de la lumière) ; indicateurs de colorant chargent préférentiellement dans les cellules musculaires lisses.
- Conserver à température ambiante dans l’obscurité pendant 2 h en effleurant la paroi du tube toutes les 15-20 minutes pour remettre en suspension le tissu rétinien. Par la suite, diluer l’homogénat 1:4 avec la solution de la LCH à réduire encore les colorant de chargement.
NOTE : Navires restent viables pendant 6 h (lorsqu’il est conservé à 4 ° C et dans le noir) ; Toutefois, il est recommandé que les expériences sont lancées dès que possible pour réduire l’impact de la compartimentation du colorant dans les organites internes ou extrusion du colorant au fil du temps. - Transfert en 1 à 2 mL d’homogénat rétinienne à une chambre d’enregistrement à fond de verre (partiellement remplie de LCH) montée sur la scène d’un microscope inversé Ca2 + microfluorimétrie ou au système de microscopie confocale.
- Artérioles perpendiculaires à la direction du flux d’ancrage dans l’ensemble de la chambre d’enregistrement, avec feuillets de fil de tungstène (50 µm de diamètre, 2-4 mm de longueur) espacée de ~ 100-200 µm le long de la longueur du bateau (voir Figure 3) à l’aide d’une technique similaire à celle décrite à l’étape 2.3.
- Perfuse le bain avec une solution normale Ca2 + Hanks à 37 ° C. Positionner la prise de livraison de drogue comme illustré sur la Figure 3 et appliquer des médicaments aux bateaux comme indiqué au point 2.17.
- Pour classiques Ca2 + imagerie, éclairer le navire à 340/380 nm via un objectif à immersion d’UV huile (par exemple, 100 X, NA 1.3) et recueillir la fluorescence émise à 510 nm via un photon counting tube photomultiplicateur (PMT).
- À la fin de chaque expérience, mesurer la fluorescence de fond par trempe navire avec une solution contenant MnCl (voir tableau 1). Utiliser des ratios de la fluorescence de fond corrigée (R-F340/F380) pour analyse ou convertir en intracellulaire Ca2 + ([Ca2 +]i) à l’aide de Rmin et mesuresmax R (voir tableau 1, appliqué avant la trempe 24) et l' équation de Grynkiewicz25.
- Pour l’imagerie2 + Ca confocale, exciter Fluo-4 chargés de navires à 488 nm et capture les émissions qui en résultent de fluorescence à 490-535 nm dans chaque ligne scan (xt) ou les modes de balayage xyt (512 x 512 pixels ; sténopé suggérée 300 nm). Normaliser les mesures de la fluorescence enregistré au temps t = 0 s (F/F0). Évaluer toute modification [Ca2 +]i au cours des médicaments, des demandes ou pressurisation en mode hors connexion dans des régions spécifiques d’intérêt (ROIs) en utilisant le logiciel d’analyse image.
- Si nécessaire, allez Ca2 + imagerie avec pression myographie.
NOTE : Les descriptions ci-dessus ont été optimisées pour les navires non pressurisés ; Toutefois, il est possible de combiner Ca2 + imagerie avec pression myographie comme suit.- Isoler les artérioles conformément à l’article 1. Charger avec Ca2 + indicateur colorants comme par l’Etape 3.1 ou 3.2. Transférer les artérioles dans la chambre d’enregistrement et Cathétériser conformément à l’article 2. Prenez soin de limiter l’exposition à la lumière pendant la procédure de montage.
- Mesurer Ca2 + selon étape 3.5 ou 3.7 ci-dessus. Pressurisez le navire et recommencez la mesure de Ca2 +. Mesure simultanée du diamètre des vaisseaux est tributaire de la mode de Ca2 + mesure et équipements utilisés.
Remarque : Pour confocal Ca2 + mesure il peut être nécessaire à l’image des régions séparées avant et après pressurisation en raison de la décoloration du colorant au cours de longues expositions à la lumière.
4. Patch-Clamp électrophysiologie
Remarque : Enregistrement cellule entière et monocanal est possible le muscle lisse artériolaire individuels cellules encore intégrés dans leurs artérioles parent comme suit (en utilisant les équipements décrits dans la Table des matières).
- Isoler et ancrer des artérioles rétiniennes dans la chambre d’enregistrement, comme décrit aux étapes 1, 2.3 et 3.3. Pour enregistrement de patch-clamp, le fil de tungstène feuillets sont espacés de 200 à 800 µm apart le long du vaisseau.
- Retirez la lame basale qui entoure l’artériole et débrancher électriquement adjacentes fibres musculaires lisses et les cellules endothéliales sous-jacent avant serrage patch. Pour ce faire, superfuse le bateau avec une série séquentielle de solutions enzymatiques (tableau 1) à 37 ° C pour la durée désirée.
Remarque : La durée de l’exposition de l’enzyme est optimisée pour les artérioles rétiniennes de rat (protéase, ~ 8 min ; collagénase, ~ 12 min) et dépend de la vitesse d’écoulement de la drogue du système (~ 1 mL/min sur notre set-up) et les activités de l’unité du lot des enzymes utilisés. - Évaluer le niveau de la digestion sur espacement visuel d’endothéliale et couches de muscle lisse au cours de la collagénase étape tel qu’illustré à la Figure 4. Une fois que la séparation des couches cellulaires est observée (comme illustré à la Figure 4 b), appliquer la DNAse j’ai solution (~ 4 min) puis terminer la digestion en remplacement de la solution de salle de bain avec une solution normale Ca2 + Hanks.
- Supprimer n’importe quelle fibre restante de la lame basale et/ou périphérique neuropile en balayant soigneusement l’extrémité fermée des pinces fines le long de la surface du navire.
- Tirez et polir capillaires en verre (Table des matières), remplir avec la solution de la pipette (tableau 1) et placez le titulaire de la pipette de la tête de patch clamp. Placez la pipette à un angle de 45° par rapport à la chambre d’enregistrement et le faire avancer vers le vaisseau en utilisant le réglage grossier sur un micromanipulateur motorisé.
- Sélectionnez une cellule musculaire lisse qui dépassent de la paroi des vaisseaux et dont la surface est exempte de débris visibles (voir Figure 4 b). Placer l’embout de la pipette verticalement sur la cellule d’intérêt et abaisser progressivement en utilisant le mouvement amende/lent de la micromanipulateur pour faire contact avec la membrane du muscle lisse.
- Évaluer le contact entre la cellule et pipette visuellement du mouvement cellulaire et un changement dans la pipette de résistance mesurée en utilisant le protocole d’essai de membrane (sceau) dans le logiciel d’acquisition (5 à 10 mV négatif pas de 0 mV, fréquence 25 KHz ; voir Figure 5 a(i)) .
- Lorsque la résistance du joint a augmenté de 5 fois (par exemple, passant de 2 à 10 MΩ ; Figure 5 a (ii)) appliquer transitoirement une pression négative à l’arrière du porte-pipette via un connecteur en y, robinet 3 voies, la seringue et tuyau attaché au titulaire de la pipette (assemblés de manière similaire à celle utilisée en phase de pressurisation des artérioles, voir Figure 1 b).
- Répéter les applications de pression négative jusqu'à une gigaseal (> 1 résistance GΩ ; comme indiqué par le test de la membrane dans le logiciel d’acquisition) est formé (Figure 5 a(iii)). Noter que ce processus peut prendre de 1 à 5 min. Si un gigaseal ne parvient pas à se former, choisir une autre cellule à l’aide d’une pipette de frais patch patch clamp de.
- Appliquer un potentiel de maintien à la cellule via le logiciel d’acquisition selon l’expérience en cours (généralement 0, -40 ou -80 mV).
- Étudier l’activité monocanal (sur cellules) dans la configuration actuelle. Vous pouvez également générer patches dedans-dehors en rétractant rapidement la pipette de la surface cellulaire après la formation de gigaseal.
- Comme les extrémités libres de la membrane peuvent re-recuire dans ces conditions, retirer la pipette du bain par un mouvement vertical rapide du manipulateur (réglage grossier). Retourner rapidement à travers le ménisque pour enlever la membrane réformée, laissant seulement le patch à l’intérieur de l’embout de la pipette.
- Définissez la fréquence d’échantillonnage sur le logiciel d’acquisition à 5 KHz et activer le mode d’enregistrement continu pour l’activité record. Appliquer les modifications de tensions si nécessaire via le logiciel ou de l’amplificateur.
- Si nécessaire, appliquer médicaments à patch navire/membrane comme indiqué au point 2.17.
- Si le tronçon de membranes est nécessaire, appliquer une pression négative à l’extrémité postérieure de la pipette à l’aide de la seringue jointe à un manomètre via un robinet 3 voies et un raccord en y.
- Analyser les enregistrements monocanal pour la probabilité d’ouverture et de la conductance unitaire conformément aux procédures standard26.
- Pour toute cellule actuelle enregistrement pipettes pull et polonais selon la Table des matières, remplir avec la solution de la pipette contenant l’amphotéricine B (ajouter 3 mg d’amphotéricine B à 50 µL de DMSO ; ajouter 3-6 µL de cela dans 1 mL de solution de la cellule entière pipette soniquer pour mélanger) et former un joint comme par les Etapes 4.6 à 4.9.
- En raison de l’inclusion de l’amphotéricine B il n’y a aucune nécessité à la rupture de la membrane dans l’embout de la pipette pour accéder à germes entiers. Surveiller l’accès, qui sera gagné peu à peu, en utilisant le protocole d’essai de membrane dans le logiciel d’acquisition (étape mV-20 de -40 mV, fréquence d’échantillonnage 25KHz ; voir Figure 5 b).
- Montage automatisé de capacitifs transitoires dans certains logiciels conduit à des mesures en temps réel d’accès résistance et capacité de cellule (sinon le déclin relatif des transitoires peut être évalué par œil). Une fois que la résistance d’accès tombe à 15 < MΩ, effectuer des compensations de résistance série (Figure 5) aide des cadrans de paramètre de germes entiers (résistance série et la capacité) de l’amplificateur.
- Pour ce faire, les valeurs de montage automatisé permet de définir au départ les cadrans (voir la Figure 5(ii)), puis augmentez la molette de correction de résistance série (prévision et correction si elle est disponible sur l’amplificateur) ré-ajuster les compensations de cellules entières tout en réduisant la couplage capacitive (voir la Figure 5(iii)).
- En prenant soin de ne pour plus compenser (comme illustré à la Figure 5(iv)). En règle générale, il est possible de compenser la résistance série de 75 % en mode patch perforé (requis en compensation de décalage d’être réglé à son maximum).
- Si aucun montage automatisé n’est disponible, commencez par paramètre, les paramètres de la cellule entière, cadrans à 15 pF et 15 mΩ (valeurs typiques pour ces cellules) et ajustez pour produire les résultats, comme le montre la Figure 5(ii). Augmentation de la rémunération de résistance série composer à ~ 75 % et réajuster les paramètres de la cellule entière cadrans selon la Figure 5(iii).
- Avant de commencer l’expérimentation noter la mesure de capacité cellulaire depuis le montage automatisé initial ou le cadran après compensation manuelle.
Remarque : Cette valeur est utilisée pour normaliser les courants à la taille des cellules. Compensation pour la résistance série peut devoir être ajustée au cours de l’expérimentation, comme accès peuvent continuer à l’améliorer en raison davantage d’incorporation d’amphotéricine B dans le patch. - Appliquent les médicaments aux navires comme indiqué au point 2.17. Appliquer des protocoles de tension (étapes ou rampes d’accès) selon les conditions expérimentales.
NOTE : Protocoles de step tension typique, 0,1 - 1 s dans la durée, sont appliquées dans l’exploitation potentiel en 10-20 mV incrémente toutes les 5-10 s pour produire une famille de courants activés par tension. Également utiliser des protocoles de rampe pour mesurer les courants à une série de tensions dans un « sweep » par la montée en puissance lentement la tension (100-200 mV/s) de p. ex. -80 à + 80 mV (appliqué toutes les 5-10 s) avec un échantillonnage actuellement hors du courant à intervalles de 10 mV au cours de la rampe. - Il est possible de combiner Ca2 + imagerie avec patch-clamp d’enregistrement comme suit. Isoler les artérioles conformément à l’article 1. Charger avec Ca2 + indicateur colorants selon les étapes 3.1 ou 3.2. Montez dans la chambre d’enregistrement conformément à l’article 4. Prenez soin de limiter l’exposition à la lumière au cours de ces procédures.
Remarque : À ce jour il n’a pas été possible de combiner le patch clamp avec études myographie pression due à la perte de la membrane basale et l’intégrité du navire pendant le processus de dissociation enzymatique
Résultats
Figure 6 a montre un schéma de l’arbre vasculaire rétinienne de rat. Le diamètre s’étend de la première commande (30-45 µm), second ordre (20 à 30 µm) et artérioles pré capillaires (8-20 µm) a été confirmée expérimentalement dans notre laboratoire par imagerie confocale de rat immunohistochimique de rétine entier-montent des préparations étiquetée pour l’actine musculaire lisse α (Figure 6 b). Lors de la dissociation de la rétine, primaires, secondaires et pré capillaires artérioles peuvent être identifiés à l’issu de leur calibre et la disposition des cellules musculaires lisses vasculaires. Les artérioles de premier et de deuxième ordre apparaissent visuellement similaires sous microscopie lumineuse, mais peuvent être distingués en fonction de leur taille (Figure 6). Les pré capillaires artérioles sont les vaisseaux artériels plus petits dans la préparation et sont facilement reconnaissables grâce à leur disposition plus clairsemée des fibres musculaires lisses vasculaires. Les artérioles isolés peuvent être bien différenciées de capillaires et veinules dans l’isolement. Capillaires n’apparaissent comme un réseau de vaisseaux de petit calibre (4 à 10 µm de diamètre), tandis que les veinules sont minces parois et manque de couverture de cellules musculaires lisses (Figure 6). Primaires, secondaires et pré capillaires artérioles conviennent à pression myographie, Ca2 + imagerie et patch clamp études.
La figure 7 montre une expérience myographie pression où une artériole rétiniennes primaires de rat a été canulé et la porté à 40 mmHg de la pression intraluminale. L’artériole est ensuite maintenue à cette pression pour permettre le développement du tonus myogénique avant l’ajout du 0Ca2 + Hanks contenant 10 µM wortmannin pour obtenir le diamètre passif du navire. Figure 7 a montre des microphotographies de l’artériole à divers moments au cours de l’expérience. Un enregistrement plein temps montrant les changements dans le diamètre du vaisseau au fil du temps ont été tracées à la Figure 7 b à l’aide de logiciels de détection personnalisé fait27. Immédiatement après la pressurisation dilate le navire, qui est ensuite suivie par une constriction myogénique active qui atteint un niveau d’équilibre après 15 min. Addition de 0Ca2 + Hanks'/ wortmannin solution dilate le navire à un niveau similaire à celui observé à la suite de l’étape de pression initiale. Comme décrit ci-dessus, les médicaments peuvent être appliqués aux navires avant ou suivante pressurisation d’étudier les mécanismes qui sous-tendent le développement et le maintien du tonus myogénique dans ces vaisseaux. En utilisant cette approche, nous avons déjà montré que les caneaux activés par des canaux de récepteur transitoire vanilloïde potentiel 2 (TRPV2) et et T-voltage-dépendants Ca2 + canaux de type L jouent un rôle central en facilitant le développement du tonus myogénique en premier et second ordre rat artérioles rétiniennes20,21,22. Nous avons également rapporté que grande conductance Ca2 + activé potassium canaux (canaux de BK)19,28 Kvcontenant 1 voltage-dépendants K+ canaux Loi et s’opposer à l’activité myogène dans ces navires, puisque l’addition d’inhibiteurs spécifiques pour chacun de ces canaux déclenche une vasoconstriction (Figure 7).
Figure 8 montre des exemples classiques et confocale Ca2 + imagerie en artérioles rétiniennes avant et après une exposition au peptide vasoconstricteur, l’endothéline-1 (Et-1). Dans les enregistrements de base de fura-2 classiques (Figure 8 a), Et-1 (10 nM) provoque une augmentation biphasique dans [Ca2 +]j’ai dans la couche musculaire de lisse artériolaire rétinien, comprenant une composante transitoire initiale suivie d’une baisse soutenue composant "". Nous avons déjà caractérisé les éléments transitoires et soutenues comme étant due à la libération de Ca2 + par le réticulum endoplasmique et l’influx de Ca2 + de l’espace extracellulaire, respectivement le29. Base de fluo-4 Ca2 + imagerie confocale fournit une image plus détaillée des effets de l’Et-1 au niveau cellulaire. Dans ces expériences, il est évident que les lisses classés changements mondiaux [Ca2 +]j’ai observé dans notre résultat d’études microfluorimétrie de Et-1 stimuler l’activation de répétitif asynchrone [Ca2 +]j’ai oscillations dans les cellules de muscle de lisse artériolaire rétinien voisins le long de la paroi des vaisseaux (Figure 8 b, C; 30).
La figure 9 montre des exemples d’enregistrements pince patch monocanal et cellules entières de fibres musculaires lisses des artérioles rétiniennes. A ce jour, nous avons effectué les deux monocanal sur cellules et inside-out patch clamp enregistrements22,28. Figure 9 a, B, par exemple, montrent une sur cellules patch clamp d’enregistrement avant et tronçon de membrane suivants (généré en appliquant une pression négative à la pipette). Ce patch particulier contient deux canaux qui est activés par l’étirement mécanique. Nous avons déjà démontré que ces courants peuvent être inhibées en utilisant TRPV2 canal anticorps bloquant les pores22. La conductance unitaire des canaux (249,71 ch) est également compatible avec ces courants par TRPV2,31.
Courants activés par tension de cellules entières peuvent être évoqués à l’aide de protocoles de step de tension. La figure 9 montre une famille de tension-lancés de type K+ courants enregistrés à l’aide d’une telle approche. Ces courants deviennent évidents lorsque les autres grands courants présent dans ces cellules (par exemple, BK et Ca+-activé Cl– courants) sont bloqués à l’aide de certains agents pharmacologiques32,,33. Courants, par le biais de canaux ioniques voltage-dépendants non ou faiblement sont généralement examinés au moyen de protocoles de rampe de tension. Nous avons utilisé ces protocoles pour identifier et caractériser les courants TRPV2 activées par hypotonique stretch22 et canal agonistes (Figure 9) dans les fibres musculaires lisses des artérioles rétiniennes.
La figure 10 illustre la double pression myographie et Ca2 + imagerie confocale appliquée dans une artériole rétiniennes primaires de rat. Pressurisation déclenche une fréquence accrue de [Ca2 +]i oscillations dans les cellules musculaires lisses individuelles semblables à ceux observés avec l’Et-1. Nous avons déjà montré que ces oscillations sont déclenchées par la sommation de Ca2 + (Ca2 + sortie événements localisés) d’étincelles et de contribuer à la génération de tonus myogénique20.
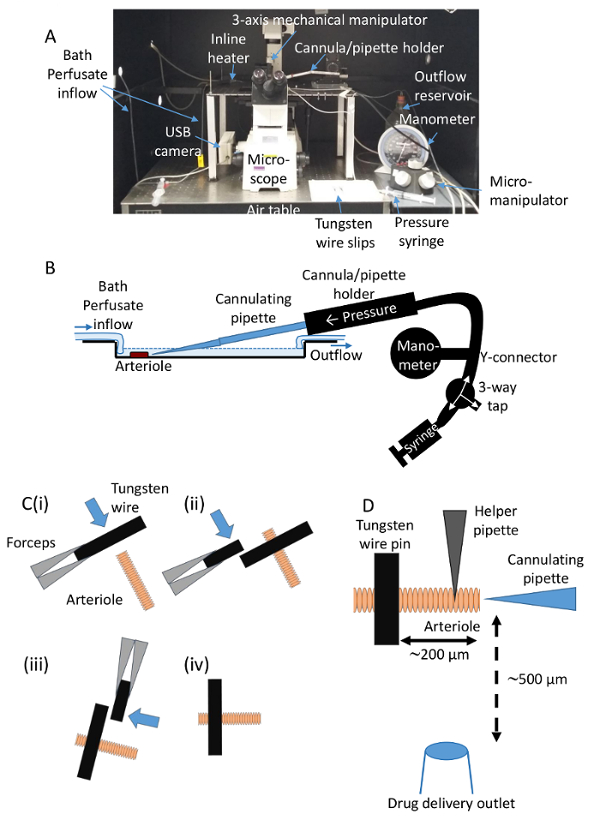
Figure 1 . Montage expérimental pour pression myographie en artérioles rétiniennes rat. Matériel d’expérimentation A) y compris microscope inversé, chauffe-eau en ligne pour le bain perfusat, 3 axes mécaniques et micro-manipulateurs, manomètre, titulaire de la canule et table à air. Schéma B) montrant la disposition optimale des cannulating pipette et bateau d’intérêt dans la chambre d’enregistrement. Ce diagramme illustre également l’installation de l’équipement de pressurisation. Schéma C) montré le processus d’ancrage et le déplacement du navire à l’aide de bordereaux de fil de tungstène supplémentaire tenue à pinces fines. (i) déposer 1st maille pour bloquer le navire. (ii, iii) Utiliser des feuillets additionnels pour décaler l’occlusion feuillet (direction indiquée par la flèche) et le navire d’accompagnement dans l’orientation optimale indiquée au point iv. Schéma D) montrant un positionnement optimal de l’occlusion bordereau de fil de tungstène, pipette d’assistance et la canule en ce qui concerne le navire comme prévu avant la canulation. La prise de la drogue du système est placée à une distance de ~ 500 µm du navire pour réduire les artefacts de mouvement au cours de la demande de drogue. S’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
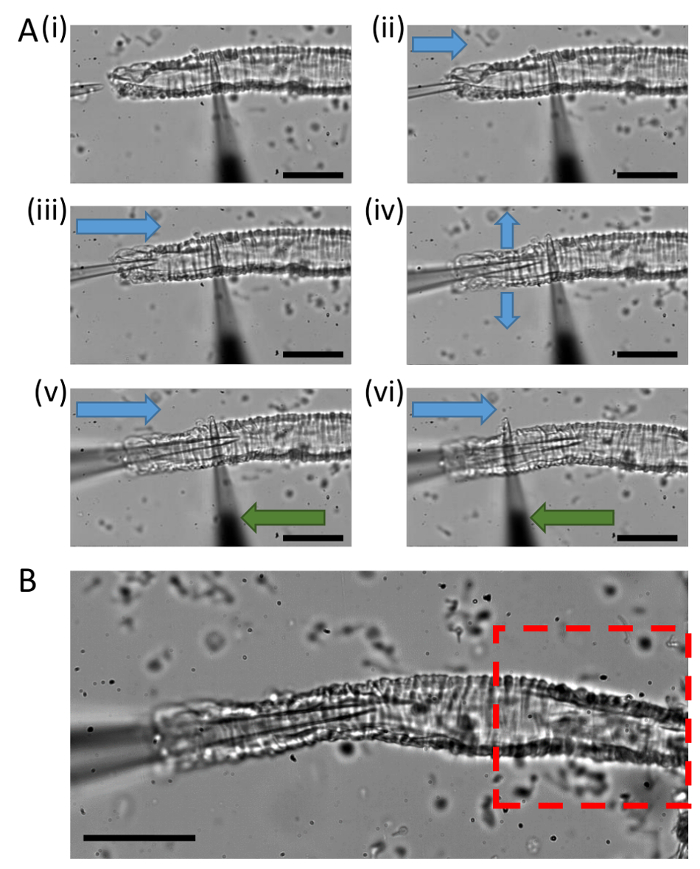
Figure 2 . Processus de canulation pour pression myographie. Photomicrographies A) montrant une artériole rétinienne ancré dans la chambre d’enregistrement avant le (i), pendant (ii)-(v) et suivante canulation (vi). Flèche bleue indique la direction du mouvement de la canule tandis que la flèche verte indique la direction du mouvement de la pipette d’assistance. Photomicrographie de B) montrant la région optimale pour l’enregistrement de l’activité myogène pendant la pressurisation en surbrillance en rouge. Notez, réglage de la lumière et de la mise au point pour augmenter le contraste des parois des vaisseaux permet mieux suivi des bords de navires pour une analyse automatisée. Barre d’échelle indique 50 µm. s’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
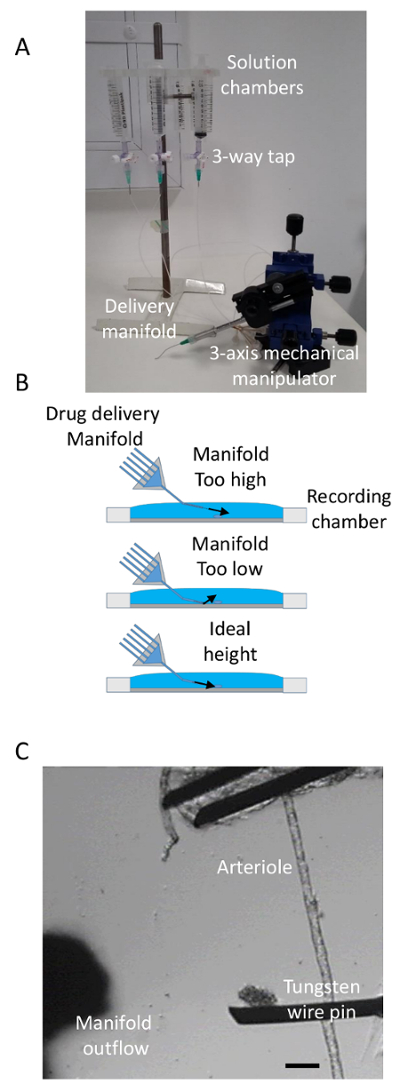
Figure 3 . Livraison de drogue. A) l’équipement utilisé pour la livraison de drogue montrant des réservoirs de solution connectés à un collecteur de diffusion multicanal contrôlée par robinets 3 voies et attaché à un manipulateur mécanique 3 axes. B) schéma montrant le positionnement vertical optimal de l’administration de médicaments multiples par rapport à la chambre d’enregistrement. Photomicrographie de C) d’un navire ancré dans la chambre d’enregistrement montrant le positionnement idéal de la prise de livraison de drogue. Barre d’échelle représente 100 µm. s’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
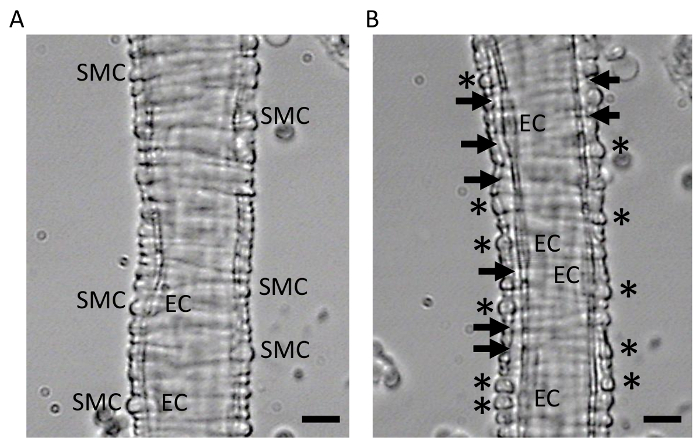
Figure 4 . Digestion enzymatique des artérioles rétiniennes pour patch clamp de enregistrement. Lumière des micrographies d’une artériole rétinien avant (A) et après digestion enzymatique (B). Notez la séparation physique (indiquée par des flèches) des cellules musculaires lisses (CML) des cellules endothéliales sous-jacent (ECs). Les cellules musculaires lisses adaptés pour le serrage de patch sont marqués d’un astérisque. Barre d’échelle représente 10 µm. s’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
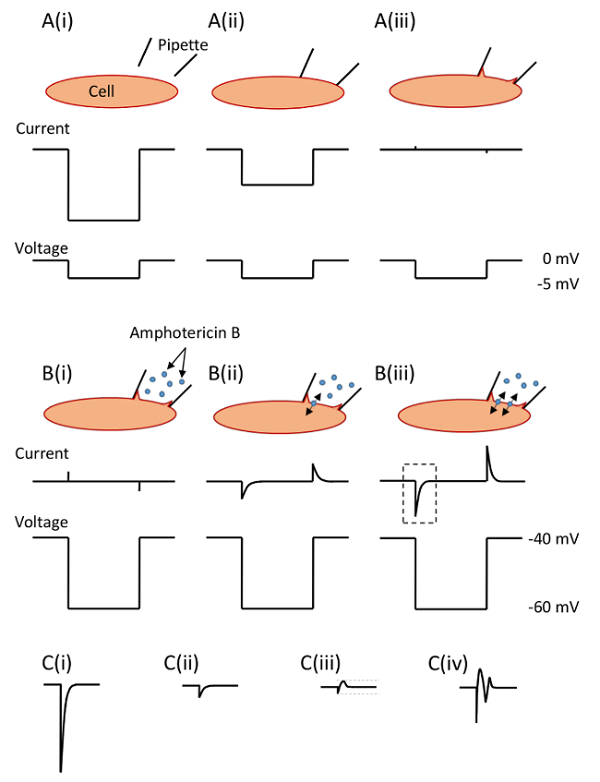
Figure 5 . Single channel et enregistrement de germes entiers patch clamp. Illustration A) des essais courants observés pendant le protocole « joint test » lorsque : (i) la pipette pénètre dans le milieu externe, (ii) l’embout de la pipette entre en contact avec la membrane plasmique muscle lisse vasculaire et (iii) l’aspiration est appliqué au dos de la pipette pour permettre la formation de gigaseal. Après compensation de capacité de la pipette à l’aide de l’amplificateur de patch clamp, courants monocanal peuvent désormais être enregistrées dans la configuration sur cellules ou un patch de membrane peut être excisé en se retirant rapidement la pipette pour créer un patch « inside-out ». B) des modifications actuelles associées au développement d’accès électrique à l’intérieur de la cellule durant l’application de la cellule entière amphotéricine B perforé patch clamp technique (i) : (ii) que l’amphotéricine B partitions dans la membrane, accès résistance aux chutes et transitoires de la capacitance a suscité pendant hyperpolarisant mesures de tension (de -40 à -60 mV) de plus en plus ; (iii) une fois que l’accès de résistance (Ra) est tombé à 15 < MΩ, qui prend habituellement 5-10 min après la formation gigaseal, l’expérimentation est possible. C) avant l’enregistrement de cellules entières, accès résistance et capacité de la cellule doit être compensé à l’aide des cadrans pertinentes sur l’amplificateur de pince de patch. Valeurs d’accès capacité de résistance et de la cellule fournies par des fonctions automatisées dans le logiciel de patch clamp peuvent être utilisés pour aider à orienter ce processus : (i) montre la capacité de la passagère avant la rémunération tirée de la zone sélectionnée en B(iii) ; (ii) montre la réduction de la capacité transitoire normalement observée lorsque la résistance de l’accès et la capacité sont indemnisées ; (iii) compensation de résistance série puis doit être corrigée vers le haut à 75 % et l’accès de la résistance et compensations de capacitance adaptées telle que le transitoire qui en résulte doit être relativement égal en amplitude ci-dessus et au-dessous du niveau du plateau du courant lors l’étape. (iv) il faut pour s’assurer que la résistance de l’accès n’est pas plus compensée (indiquée par la présence de « sonner » du transitoire), qui peut se produire parfois si l’accès continue de s’améliorer au cours de l’expérience. S’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
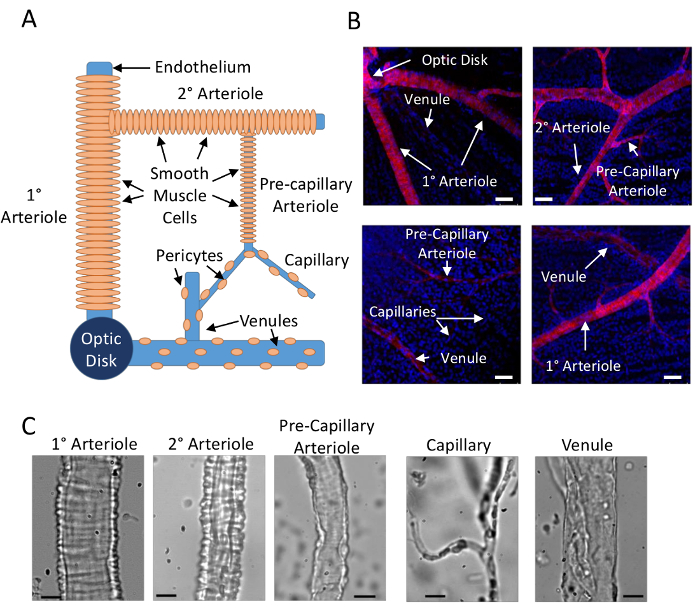
Figure 6 . Identification des artérioles rétiniennes isolé du rat. Illustration A) montrant la disposition de l’arbre microvasculaire rétine de rat. B) images confocales de rat rétinienne artérioles et les veinules dans plat montent des préparations colorées pour αSMA (rouge ; les noyaux sont colorés en bleus ; échelle barres représentent 50 µm). C) micrographes d’isolé 1 °, 2 ° et artérioles pré capillaires, un réseau capillaire et veineux (échelle barres représentent 10 µm). S’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
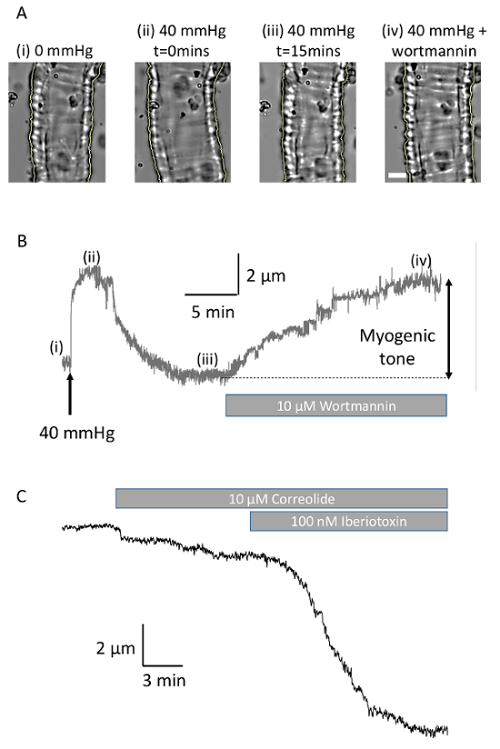
Figure 7 . Enregistrements myographie pression artériolaire. A) Images d’une montrant canulées arteriole rétinienne (i) diamètre (environ 35,6 µm), (ii) une dilatation à la pressurisation, (iii) développement de vasoconstriction myogène et (iv) la dilatation due à l’addition de 10 µM wortmannin dans 0Ca de repos2 + Solution de hanks. Balance bar représente 10 µm. B) terrain cours fois le diamètre du vaisseau pour l’expérience complète montré à A (échantillonné à 2,5 images/s). C) diamètre tracer d’une artériole différent sous équilibre tonus myogénique (µm de diamètre 38,7) montrant les effets de la Kv1 canal inhibiteur correolide (10 µM) et le BK canal inhibiteur ibériotoxine (100 nM) (échantillonnés à 0,5 images/s). S’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
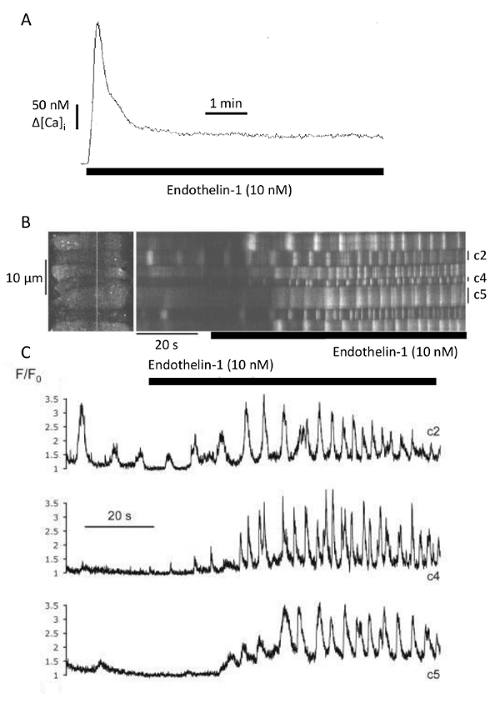
Figure 8 . Effets de l’Et-1 sur [Ca2 +] j’ai activité en artérioles rétiniennes rat de signalisation. A) conventionnelle fura-2-fonction enregistrement montrant les effets de l’Et-1 (10 nm) sur global [Ca2 +]i. Basale [Ca2 +]j’ai était de 82 nM dans cette artériole 1 °. B) Fluo-4-based confocal xt images montrant les effets de l’Et-1 sur [Ca2 +]j’ai au niveau cellulaire. Parcelle C) de l’intensité de fluorescence normalisée (F/F0) mesurés dans les cellules, dans la mesure indiquée dans la B. Ce chiffre a été modifié par Tumelty et al. 30 avec permission. S’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
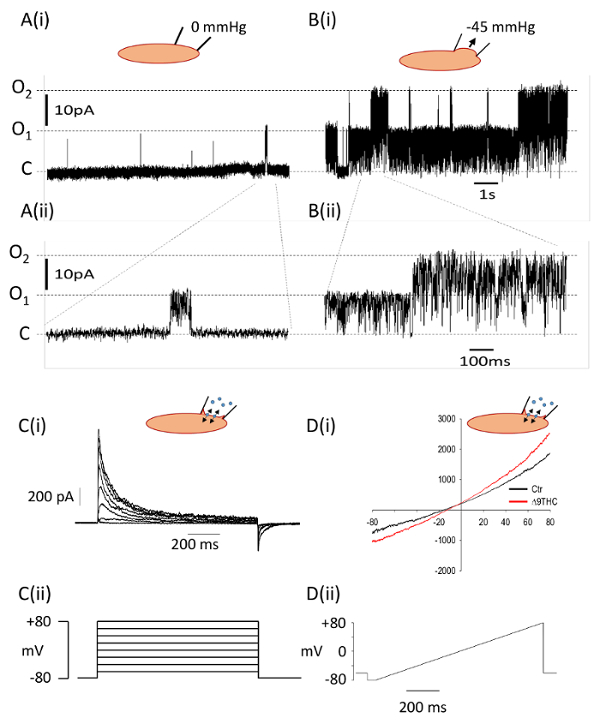
Figure 9 . Monocanal et enregistrements de patch-clamp de la cellule entière de cellules de rat le muscle lisse artériolaire rétinien. A, B) enregistrements monocanal sur cellules de la membrane même patch avant (A) et (B) lors de l’application d’une pression négative (-45 mmHg) pour le patch pipeter. Deux canaux est présents dans le patch (12,81 courant unitaire pA ; pS de conductance unitaire 249.71) qui montrent une augmentation substantielle dans l’activation des conditions extensibles. Certaines régions des panneaux supérieurs (i) sont indiquées sur un temps plus rapide base dans les panneaux inférieurs (ii). C) famille des courants des canaux de type K+ (i) enregistré en mode cellule entière en présence d’inhibiteurs de BK et Ca2 +-activé les inhibiteurs du canal Cl– , obtenues en réponse à 20 mV tension par paliers entre -80 mV à + 80 mV (ii). Courants de germes entiers D) (i) provoquées par des rampes de tension entre -80 mV et + 80 mV avant (ligne noire) et Pendant l’application (ligne rouge) de la TRPV2 canal agonistes delta-9-tétrahydrocannabinol (THC-Δ9). Le protocole de rampe de tension utilisé est affiché dans le panneau inférieur (ii). S’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
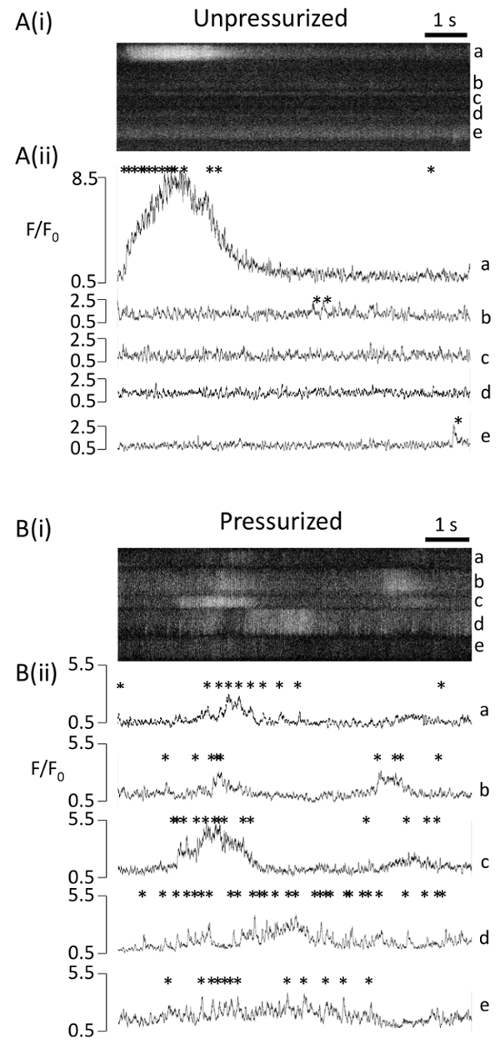
Figure 10 . Ca2 + imagerie confocale avant et après pressurisation d’une artériole rétine de rat. Tanpom représentant xt confocal scans (i) des cellules de muscle de lisse artériolaire rétinien sous (A) et (B) pressurisé conditions obtenues à partir des régions distinctes du même navire. (ii) a - e, comme indiqué dans (i), comploté contre la montre, change en fluorescence normalisée (F/F0) enregistré dans des cellules individuelles. Les astérisques indiquent individuels subcellulaire Ca2 + des étincelles qui augmentent en fréquence après pressurisation et regrouper pour déclencher cellulaire Ca2 + oscillations. S’il vous plaît cliquez ici pour visionner une version agrandie de cette figure.
| Composé (mM) | Faible Ca2 + Hanks | 0Ca2 + Hanks | Hanks normal | Enzyme isolement protéase | Enzyme isolement collagénase | Enzyme isolement DNAse | Étancher la solution | Solution de rmin | Solution de Rmax | Cellule attachée solution extracellulaire | Cellule attachée la solution de la pipette | Cellule entière solution extracellulaire | Solution de la pipette de cellules entières |
| Pureté de l’eau (résistance) | ≥ 15 MΩ.cm | ≥ 15 MΩ.cm | ≥ 15 MΩ.cm | ≥ 15 MΩ.cm | ≥ 15 MΩ.cm | ≥ 15 MΩ.cm | ≥ 15 MΩ.cm | ≥ 15 MΩ.cm | ≥ 15 MΩ.cm | ≥ 15 MΩ.cm | ≥ 18 MΩ.cm | ≥ 15 MΩ.cm | ≥ 18 MΩ.cm |
| NaCl | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | 140 | |||
| kCl | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 6 | 138 | ||
| D-Glucose | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | 5 | |
| MgCl2 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1.3 | 1 |
| HEPES | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 | 10 |
| CaCl2 | 0,1 | 2 | 0,1 | 0,1 | 0,1 | 10 | 2 | 2 | 2 | 0,2 | |||
| EGTA | 4 | 0,5 | |||||||||||
| MnCl | 10 | ||||||||||||
| Ionomycine | 0,01 | ||||||||||||
| KOH | 140 | 130 | |||||||||||
| Acide D-gluconique | 130 | 130 | |||||||||||
| NaOH | 10 | ||||||||||||
| Pénitrem A | 0,0001 | 0,0001 | 0,0001 | ||||||||||
| 4-aminopyridine | 10 | ||||||||||||
| Nimodipine | 0,01 | 0,01 | |||||||||||
| Fluoxetine | 0,1 | ||||||||||||
| acide 9-anthracenecarboxylic | 1 | ||||||||||||
| Amphotéricine B | 300-600 μg mL-1 | ||||||||||||
| Protéase Type XIV | ~0.01 % (0,4 à 0,6 mg/40 mL) | ||||||||||||
| Collagénase Type 1 a | 0,1 % (6 mg/60 mL) | ||||||||||||
| DNAse I | 20 KU (20 μL de 1 MU/mL bouillon dans 20 mL) | ||||||||||||
| pH | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.4 | 7.2 |
| titré par | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | NaOH | Tris | Tris | NaOH | KOH |
Table 1. Composition des solutions utilisées en expérimentation, y compris des exemples d’externes et pipette solutions utilisées pour monocanal (TRPV2) et de germes entiers courants (Type A).
Discussion
Les protocoles décrits ci-dessus nécessitent la pratique mais doivent être réalisables avec un minimum de dépannage. Sur une journée moyenne nous obtenir des artérioles utilisables de 6 à 8 de l’isolement et de réaliser des expériences réussies de 3-4. Si des problèmes surviennent, cependant, il y a quelques mesures qui peuvent être prises pour aider à améliorer le taux de réussite. Parfois nous avons trouvé, en particulier lors de l’utilisation de jeunes rats (< 8 semaines), que le rendement des artérioles peut être faible. Pour contourner ce problème, nous suggérons de centrifugation le tissu rétinien (10-30 s à 500 x g) entre chacun d’eux de la trituration étapes par étapes 1.12-1.14. Souvent, cela permet d’améliorer le rendement des navires mais permettra également d’augmenter la quantité de débris de cellules dans le cadre de la préparation.
Lorsque canulant navires pour études myographie pression, qu'il est important de vérifier les artérioles avec soin pour n’importe quel côté-branches qui peuvent avoir été clivés à proximité du site de bifurcation. Cela représente une cause fréquente de fuite et de perte de pression au cours de l’expérimentation. Le principal problème pouvant survenir avec les [Ca2 +]j’ai protocoles est le niveau de chargement de colorant. Chargement de colorant pauvre mène à faibles rapports signal-bruit, tout en surchargeant les résultats dans la perturbation de l’homéostasie2 + Ca normal. Pour réduire la probabilité d’une de ces questions, une petite aliquote d’homogénat rétinienne peut être enlevée, et vaisseaux isolés vérifié périodiquement pendant le protocole de chargement. Lorsque l’entreprise patch clamp expériences, le taux de réussite de la formation de gigaseal est fortement tributaire de comment bien la lame basale a été digérée. Quand ce protocole d’essai au départ ou à l’aide de nouveaux lots d’enzymes, il peut être nécessaire d’ajuster la concentration/durée de la digestion enzymatique. Attentivement suivi la séparation des couches endothéliales et muscle lisse assurera la digestion suffisante pour enlever assez basale (laminal) pour obtenir l’accès. Un suivi attentif est également nécessaire pour éviter la digestion excessive, qui peut se manifester comme le bateau commence à se contracter. Dans ce cas, les cellules musculaires lisses sont souvent trop fragiles pour enregistrement de patch clamp. Lorsque vous appliquez des enzymes, il est important d’inclure la DNAse I à garantir l’élimination des brins d’ADN libérée de cellules endommagées au cours du processus d’isolement. Fragments d’ADN sont collantes et causer la pince d’adhérer à l’artériole pendant les étapes finales du processus de nettoyage (étape 4.4), ce qui entraîne souvent la perte de navire. Nettoyage des vaisseaux est techniquement difficile et est mieux réalisé à fort grossissement (X 20) avec douces mouvements de balayage de pinces fermées de la plus belle possible diamètre. Entre les balayages, nettoyer la pince avec rouleau de laboratoire.
Comme l’a souligné plus tôt, une clé était motivée par le développement des protocoles décrits dans ce manuscrit afin de mieux comprendre pourquoi la circulation sanguine est perturbée au cours des maladies vasculaires rétiniennes. La plupart de nos travaux à ce jour ont porté sur l’oeil diabétique maladie28,33. Artérioles peuvent être isolées de la rétine des modèles expérimentaux de rongeurs du diabète à l’aide des méthodes décrites à l’article 1. Lors de l’expérimentation sur les artérioles rétiniennes isolées des animaux diabétiques, il est important d’essayer de reproduire étroitement les conditions hyperglycémiques vécues par les navires en vivo. Pour cette raison, nous soulèverions normalement les niveaux de D-glucose dans notre isolement et de la solutions expérimentales à 25 mM. Épaississement des membranes de sous-sol vasculaires est un phénomène bien connu dans les vaisseaux rétiniens au cours du diabète34,35. Lors de l’utilisation des animaux diabétiques prolongée (durée de la maladie > 1 mois), les concentrations de l’enzyme accrue ou digestion fois sont souvent nécessaire pour permettre l’application des méthodes d’enregistrement patch clamp.
Une limitation importante de l’utilisation ex vivo isolé des artérioles rétiniennes pour étudier la physiologie vasculaire rétinienne et la physiopathologie est la perte du neuropile rétinienne environnante. Bien que les cellules neuronales et gliales rétinienne permet un accès facile aux cellules le muscle lisse vasculaire rétinienne pour les études de physiologie cellulaire, la réponse des vaisseaux aux médiateurs vasoactifs peut changer de façon spectaculaire en absence et en présence de la rétine tissus. Les actions de l’adénosine triphosphate (ATP), par exemple, fournissent une bonne illustration de ce point. En isolé rat artérioles rétiniennes, addition d’ATP déclenche une robuste constriction des vaisseaux36, tandis que dans la présence d’un neuropile intact, les vaisseaux dilatent37. Par conséquent, dans la mesure du possible, nous essayons généralement de valider les résultats principaux de nos préparatifs arteriole isolés à l’aide de ex vivo rétinienne ensemble-montages et in vivo des mesures du bateau diamètre et sang écoulement16,37 . À noter, les nouvelles méthodes ont émergé récemment pour l’étude des petites artérioles et capillaires en entier perfusé rétines porcine ex vivo38,,39. Ces préparations sont susceptibles d’améliorer considérablement notre compréhension de comment la rétine neuropile régule la rétine tonus artériolaire et capillaire et comment les changements dans la rétine hémodynamique modulent l’activité neuronale dans la rétine.
Bien que les procédures décrites dans cet article sont axées sur l’utilisation des artérioles rétiniennes isolé du rat pour la physiologie des cellules des muscles lisses des artérioles compréhension, nous développons actuellement des protocoles pour permettre également à l’étude de la fonction des cellules endothéliales ces navires. Dans les travaux préliminaires, nous avons réussi à modifier la digestion enzymatique des segments d’artériolaires rétiniens pour produire des tubes de cellules endothéliales viables qui sont prêtent au Ca2 + imagerie et patchclamp études d’enregistrement. Canulation des artérioles isolés aux deux extrémités, permettant intraluminal fourniture de médicaments, pourrait à l’avenir également activer endothélium-dépendante réponses vasodilatatrice à étudier dans ces vaisseaux.
Déclarations de divulgation
Le Dr Joanna Kur est maintenant employé de Medtronic (Twin-Cities, Minnesota, USA), son travail actuel n’est pas incompatible avec celle présentée ici.
Remerciements
Développement des protocoles décrits dans le présent document a été soutenu par les subventions accordées par les organismes de financement suivantes : BBSRC (BB/I026359/1), Fight for Sight (1429 et 1822), The Juvenile Diabetes Research Foundation (2003-2-525), Wellcome Trust (074648/Z/04), British Heart Foundation (PG/11/94/29169), HSC R & D Division (4748/STL/13) et CRM (MC_PC_15026).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Béchers | Fisherbrand | 15409083 | Ou tout autre produit équivalent |
| Ciseaux incurvés | Fisher Scientific | 50-109-3542 | Ou tout produit équivalent |
| Pipette/transfert en plastique jetable | Sarstedt | 86.1174 | 6mL est le meilleur mais d’autres tailles sont acceptables ; retirer la pointe pour élargir l’ouverture |
| Microscope de dissection | Brunel Microscopes LTD | Ou n’importe quel produit équivalent | |
| Forceps | World Precision Instruments | Dumont #5 14095 | Toute pince fine équivalente |
| Pipette Pasteur | Fisherbrand | 11546963 | Polie au feu pour réduire les frottements mais pas assez pour rétrécir l’embout |
| Pétri | Sigma-Aldrich | P7741 | Ou tout produit équivalent 10cm |
| Pipette tétine | Fisherbrand | 12426180 | Ou tout Produit équivalent |
| Alimentation en eau purifiée | Système | intégral de purification d’eau Merek Milli-Q | Ou tout système équivalent |
| Tube à essai à fond rond | Fisherbrand | 14-958-10 B | 5 mL ; tout produit équivalent |
| Pince à sertage | Fisher Scientific | 17-467-230 | Ou tout produit équivalent |
| Lames à un seul tranchant | Agar Scientific | T585 | Ou tout produit équivalent produit équivalent |
| Sylgard | Dow Corning | 184 | Ou toute surface souple ; |
| Rack pour éprouvettes | Fisherbrand Derlin | 10257963 | Ou tout produit équivalent |
| Manipulateur | |||
| Scientifica | LBM-7 ; | x2 (ou tout produit équivalent) | |
| Tarauds à 3 voies | Cole-Parmer | UY-30600-02 | Ou tout produit équivalent |
| Table à air | Technical Manufacturing Corporation ; | Banc propre | ou tout logiciel |
| d’analyse de produit équivalent ; | Image J | https://downloads.imagej.net/fiji/ | Logiciel d’imagerie gratuit |
| Plugin d’analyse | Myotraker ; | https://doi.org/10.1371/journal.pone.0091791.s002 | Plug-in personnalisé pour imageJ Disponible gratuitement en téléchargement |
| Pipette de canulation en verre | Instruments de perception mondiale | TW150F-4 | Ou tout produit équivalent |
| Ordinateur | Dell | Optiplex 7010 | Ou tout produit équivalent |
| Thermomètre numérique | RS | 206-3722 | Ou tout produit équivalent |
| Fluo-4-AM | Thermo Fisher Scientific | F14201 | Faire 1 mM de stock dans DMSO |
| Forceps | World Precision Instruments | Dumont #7 14097 | Toute pince fine équivalente |
| Fura-2-AM | Thermo Fisher Scientific | F1221 | Faire 1 mM de stock dans DMSO |
| Chambre d’enregistrement à fond de verre | Warner Instruments | 64-0759 | Ou tout produit équivalent |
| Aide pipette en verre | Instruments World Percision | IB150F-3 | Ou tout produit équivalent |
| Chauffage en ligne | Équivalent commercial sur mesure SH-27B Solution Chauffage en ligne de l’appareil Harvard | ||
| Instruments de mesure | P97 | ou tout produit équivalent | |
| Microforge + ; Microscope Olympus CX 31 | Verrerie | Pointe fine F-550 | Ou tout produit équivalent |
| Micromanipulateur | Instruments de mesure | MP-285 | Ou tout produit équivalent |
| Collecteur de distribution multicanaux ; | Automate Scientific | Perfusion Pencil | Ou tout produit équivalent |
| Pipette filler ; | BD Plastipak | 1mL | Seringue chauffée et tirée au diamètre interne de la pipette |
| Porte-pipette | Dispositifs moléculaires | 1-HL-U | Ou tout produit équivalent |
| Pompe d’aspiration | Interpet | AP1 | Pompe d’aération convertie par soufflet inversé |
| Seringue | BD Plastipak | 20mL Luer-lok | Ou tout produit équivalent |
| Fil de tungstène | Advent | W558818 | 75&mu ; m de diamètre |
| Tygon Tubing | VWR | diverses | Ou tout produit équivalent |
| Caméra USB | ; Logitech ; | HD Pro Webcam C920 | Ou tout produit équivalent |
| Logiciel de capture vidéo | Hypercam | version 2.28.01 | Ou tout produit équivalent |
| Bain d’eau | Grant | Sub Aqua 12 Plus | Ou tout produit équivalent |
| x20 objectif | Nikon | 20x/0.40 WD 3.8, &infin ;/0.17 | Ou tout produit équivalent |
| objectif x4 | Nikon | 4x/0.10, WD 30, &infin ;/- | Or tout Produit équivalent |
| Y-connecteurs | World Percision Instruments | 14012 | Ou tout produit équivalent |
| Taraudage | |||
| 3 voies | Cole-Parmer | UY-30600-02 | Ou tout produit équivalent |
| manipulateur mécanique 3 axes | Scientifica | LBM-7 ; | Ou tout produit équivalent |
| Table d’air | Technical Manufacturing Corporation ; | Banc propre | Ou tout produit équivalent |
| Amphotéricine B | Sigma-Aldrich | A2411 | 3 mg dissous quotidiennement en 50 &mu ; L de DMSO (sonicate à dissoudre) |
| Amplificateur | Molecular Devices | Axopatch 200a | Ou tout produit équivalent |
| Convertisseur analogique numérique | Axon | Digidata 1440A | Ou tout produit équivalent |
| Colgénase Type 1A | Sigma-Aldrich | C9891 ; | 0,1 mg/mL dans LCH |
| Ordinateur | Dell | Optiplex 7010 | Ou tout produit équivalent |
| Thermomètre numérique | RS | 206-3722 | Ou tout produit équivalent |
| DNAse I | Millipore | 260913 | Stock de travail 1 MU mL-1 (10 MU dilués dans 10 mL LCH) ; |
| Cage de Faraday | Fabriquée sur | Tout produit commercial équivalent | |
| Pince fine | Dumont | n° 7 | Toute pince superfine |
| Chambre d’enregistrement à fond de verre | Warner Instruments | 64-0759 | Ou tout produit équivalent |
| Headstage | Molecular Devices | CV203BU | Ou tout produit équivalent |
| Chauffage en ligne | Fabriqué sur mesure | Solution équivalente commerciale SH-27B Chauffage en ligne de l’appareil Harvard | |
| Microscope inversé | Nikon | Eclypse TE 300 | Ou tout produit équivalent |
| Extracteur de microélectrodes | Instruments de sutter | P97 | Ou tout produit équivalent |
| Microforge + ; Microscope Olympus CX 31 | Verrerie | Pointe fine F-550 | Ou tout produit équivalent |
| Micromanipulateur | Instruments de mesure | MP-285 | Ou tout produit équivalent |
| Collecteur de distribution multicanaux ; | Automate Scientific | Perfusion Pencil | Ou tout produit équivalent |
| Logiciel de patching | Dispositifs moléculaires | Pclamp v10.2 | Ou tout produit équivalent |
| Remplisseuse de pipette ; | BD Plastipak | 1mL | Seringue chauffée et tirée jusqu’au diamètre interne de la pipette |
| Porte-pipette | Dispositifs moléculaires | 1-HL-U | ou tout produit équivalent |
| Protéase Type XIV | Sigma-Aldrich | P5147 ; | 0,01 mg/mL dans LCH |
| Pipette monocanal en verre | World Percision | instruments IB150F-3 | Ou tout produit équivalent |
| Pompe d’aspiration | Interpet | AP1 | Pompe d’aération convertie par soufflet inverseur |
| Seringue | BD Plastipak | 20mL Luer-lok | Ou tout produit équivalent |
| Fil de tungstène | Advent | W557418 | 50&mu ; m diamètre |
| Tygon Tubing | VWR | tailles diverses | Tout produit équivalent pour s’adapter à |
| une caméra USB | ; Logitech ; | HD Pro Webcam C920 | Ou tout produit équivalent |
| Bain-marie | Grant | Sub Aqua 12 Plus | Ou tout produit équivalent |
| Pipette à cellules entières en verre | Warner Instruments | GC150TF-7.5 | Ou tout produit équivalent |
| x20 objectif | Nikon | 20x/0.40 WD 3.8, &infin ;/0.17 | Ou tout produit équivalent |
| x4 objectif | Nikon | 4x/0.10, WD 30, &infin ;/- | Ou tout produit équivalent |
| objectif x40 | Nikon | 40x/0.55, WD 2.1, &infin ;/1.2 | Ou tout produit équivalent |
| connecteurs en Y | World Percision Instruments | 14012 | Ou tout produit équivalent |
| Ca2+ imagerie | |||
| Tarauds 3 voies | Cole-Parmer | UY-30600-02 | Ou tout produit équivalent |
| 3 axes manipulateur mécanique | Scientifica | LBM-7 ; | Ou tout produit équivalent |
| Logiciel d’acquisition ; | Cairn Research Ltd. | Moteur d’acquisition V1.1.5 | Ou tout produit équivalent ; microfluorimétrie |
| Table d’air | Technical Manufacturing Corporation ; | Clean Bench | Ou tout produit équivalent |
| Logiciel d’analyse pour l’imagerie confocale | Image J | https://downloads.imagej.net/fiji/ | Logiciel d’imagerie gratuit |
| Ordinateur | Dell | Optiplex 7010 | Ou tout produit équivalent |
| Microscope confocal | Leica Geosystems | SP5 ; | Ou tout produit équivalent ; confocal |
| Thermomètre numérique | RS | 206-3722 | Ou tout produit équivalent |
| Pince fine | Dumont | n° 7 | Toute pince superfine |
| Chambre d’enregistrement à fond de verre | Warner Instruments | 64-0759 | Ou tout produit équivalent |
| Chauffage en ligne | Équivalent commercial sur mesure SH-27B Solution Chauffage en ligne de Harvard Appareil | ||
| microscope | Nikon | Eclipse TE2000 | Ou tout produit équivalent ; microfluorimétrie |
| Monochromateur ; | Cairn Research Ltd. | Optoscan | Ou tout produit équivalent ; microfluorimétrie |
| Collecteur d’administration multicanaux ; | Automate Scientific | Perfusion Pencil | Ou tout produit équivalent |
| Pipette filler ; | BD Plastipak | 1mL | Seringue chauffée et tirée au diamètre interne de la pipette |
| Logiciel pour microscope confocal | Leica Geosystems | LAS-AF version 3.3. | Ou tout produit équivalent ; confocal |
| Pompe d’aspiration | Interpet | AP1 | Pompe d’aération convertie par soufflet inverseur |
| Seringue | BD Plastipak | 20mL Luer-lok | Ou tout produit équivalent |
| Fil de tungstène | Advent | W557418 | 50&mu ; m de diamètre |
| Tygon Tubing | VWR | tailles diverses | Tout produit équivalent pour s’adapter |
| Bain-marie | Grant | Sub Aqua 12 Plus | Ou tout produit équivalent |
| lentille x100 | Nikon | x100 N.A. 1.3 huile | Ou tout produit équivalent ; microfluorimétrie |
| lentille x20 | Nikon | 20x/0.40 WD 3.8, &infin ;/0.17 | Ou tout produit équivalent ; microfluorimétrie |
| Objectif x20 | Leica Geosystems | HCX PL FLUOTAR, 20x/0.50, &infin ;/0.17/D | Ou tout produit équivalent ; objectif confocal |
| x4 | Nikon | 4x/0.10, WD 30, &infin ;/- | Ou tout produit équivalent ; objectif microfluorimétrie |
| x63 | Leica Geosystems | HCX PL APO, 63x/1.40 - 0.60 HUILE CS &infin ;/0.17/E | Ou tout produit équivalent ; connecteurs en Y confocaux |
| World Percision Instruments | 14012 | Ou tout produit équivalent | |
| Spécifications et réglages pour la fabrication de pipettes pour l’expérimentation | |||
| Helper Pipette | World Percision | instruments IB150F-3 | Diamètre intérieur : 0.86 mm Rampe : 261 Pression : 300 Chaleur : 280 Tirage : 0 Vélocité : 56 Temps : 250 Nombre de cycles : 4 Diamètre de la pointe : 0,5-2 &mu ; m Polissage : yes Résistance finale : >10 M&Omega ; |
| Pipette à canulation | World Percision instruments | TW150F-4 | Diamètre intérieur : 1,17 mm Rampe : 290 Pression : 300 Chaleur : 280 Traction : 0 Vélocité : 58 Temps : 150 Nombre de cycles : 4 Diamètre de l’embout : 3-10 &mu ; m Polissage : no Résistance finale : < 1 M&Omega ; |
| Instruments | World Percision | IB150F-3 | Diamètre intérieur : 0,86 mm Rampe : 261 Pression : 300 Chaleur : 280 Traction : 0 Vélocité : 56 Temps : 250 Nombre de cycles : 4 Diamètre de l’embout : 0,5-2 &mu ; m Polissage : yes Résistance finale : >5 M&Omega ; |
| Patching à cellules entières | Warner Instruments | GC150TF-7.5 | Diamètre intérieur : 1.17 mm Rampe : 296 Pression : 200 Chaleur : 287 Traction : 0 Vélocité : 50 Temps : 250 Nombre de cycles : 4 Diamètre de l’embout : 2-3 &mu ; m Polissage : utile mais pas nécessaire Résistance finale : 1-2 m&Omega ; |
Références
- Kohner, E. M., Patel, V., Rassam, S. M. Role of blood flow and impaired autoregulation in the pathogenesis of diabetic retinopathy. Diabetes. 44, 603-607 (1995).
- Hafez, A. S., Bizzarro, R. L., Lesk, M. R. Evaluation of optic nerve head and peripapillary retinal blood flow in glaucoma patients, ocular hypertensives, and normal subjects. American Journal of Ophthalmology. 136, 1022-1031 (2003).
- Curtis, T. M., Gardiner, T. A., Stitt, A. W. Microvascular lesions of diabetic retinopathy: clues towards understanding pathogenesis? Eye (London). 23, 1496-1508 (2009).
- Pournaras, C. J., Rungger-Brändle, E., Riva, C. E., Hardarson, S. H., Stefansson, E. Regulation of retinal blood flow in health and disease). Progress in Retinal and Eye Research. 27, 284-330 (2008).
- Kuwabara, T., Cogan, D. G. Studies of retinal vascular patterns. I. Normal architecture. Archives of Ophthalmology. 64, 904-911 (1960).
- Scholfield, C. N., McGeown, J. G., Curtis, T. M. Cellular physiology of retinal and choroidal arteriolar smooth muscle cells. Microcirculation. 14 (1), 11-24 (2007).
- Puro, D. G. Retinovascular physiology and pathophysiology: new experimental approach/new insights. Progress in Retinal and Eye Research. 31 (3), 258-270 (2012).
- Kur, J., Newman, E. A., Chan-Ling, T. Cellular and physiological mechanisms underlying blood flow regulation in the retina and choroid in health and disease. Progress in Retinal and Eye Research. 31 (5), 377-406 (2012).
- Delaey, C., Van de Voorde, J. Regulatory Mechanisms in the Retinal and Choroidal Circulation. Ophthalmic Research. 32 (6), 249-256 (2000).
- Metea, M. R., Newman, E. A. Glial cells dilate and constrict blood vessels: a mechanism of neurovascular coupling. Journal of Neuroscience. 26, 2862-2870 (2006).
- Pournaras, C. J., Rungger-Brändle, E., Riva, C. E., Hardarson, S. H., Stefansson, E. Regulation of retinal blood flow in health and disease. Progress in Retinal and Eye Research. 27 (3), 284-330 (2008).
- Hughes, S., Chan-Ling, T. Characterization of smooth muscle cell and pericyte differentiation in the rat retina in vivo. Investigative Ophthalmology & Visual Science. 45 (8), 2795-2806 (2004).
- Shepro, D., Morel, N. M. Pericyte physiology. The FASEB Journal. 7 (11), 1031-1038 (1993).
- Kornfield, T. E., Newman, E. A. Regulation of Blood Flow in the Retinal Trilaminar Vascular Network. Journal of Neuroscience. 34 (34), 11504-11513 (2014).
- Matsushita, K., Puro, D. G. Topographical heterogeneity of KIR currents in pericyte-containing microvessels of the rat retina: effect of diabetes. Journal of Physiology. 573, 483-495 (2006).
- Needham, M., et al. The role of K+ and Cl- channels in the regulation of retinal arteriolar tone and blood flow. Investigative Ophthalmology & Visual Science. 55 (4), 2157-2165 (2014).
- Hessellund, A., Jeppesen, P., Aalkjaer, C., Bek, T. Characterization of vasomotion in porcine retinal arterioles. Acta Ophthalmologicaogica Scandinavica. 81, 278-282 (2003).
- Delaey, C., Van de Voord, J. Pressure-induced myogenic responses in isolated bovine retinal arteries. Investigative Ophthalmology & Visual Science. 41, 1871-1875 (2000).
- Kur, J., et al. Role of ion channels and subcellular Ca2+ signaling in arachidonic acid-induced dilation of pressurized retinal arterioles. Investigative Ophthalmology & Visual Science. 55 (5), 2893-2902 (2014).
- Kur, J., Bankhead, P., Scholfield, C. N., Curtis, T. M., McGeown, J. G. Ca(2+) sparks promote myogenic tone in retinal arterioles. British Journal of Pharmacology. 168 (7), 1675-1686 (2013).
- Fernández, J. A., McGahon, M. K., McGeown, J. G., Curtis, T. M. CaV3.1 T-Type Ca2+ Channels Contribute to Myogenic Signaling in Rat Retinal Arterioles. Investigative Ophthalmology & Visual Science. 56 (9), 5125-5132 (2015).
- McGahon, M. K., et al. TRPV2 Channels Contribute to Stretch-Activated Cation Currents and Myogenic Constriction in Retinal Arterioles. Investigative Ophthalmology & Visual Science. 57 (13), 5637-5647 (2016).
- Guidoboni, G., et al. Intraocular Pressure, Blood Pressure, and Retinal Blood Flow Autoregulation: A Mathematical Model to Clarify Their Relationship and Clinical Relevance. Investigative Ophthalmology & Visual Science. 55 (7), 4105-4118 (2014).
- Scholfield, C. N., Curtis, T. M. Heterogeneity in cytosolic calcium regulation among different microvascular smooth muscle cells of the rat retina. Microvascular Research. 59 (2), 233-242 (2000).
- Grynkiewicz, G., Poenie, M., Tsien, R. Y. A new generation of Ca2+ indicators with greatly improved fluorescence properties. Journal of Biological Chemistry. 260, 3440-3450 (1985).
- Sakmann, B., Neher, E. Single Channel Recording, Second Edition. , Plenum Press. New York. 53-90 (1995).
- Fernández, J. A., Bankhead, P., Zhou, H., McGeown, J. G., Curtis, T. M. Automated detection and measurement of isolated retinal arterioles by a combination of edge enhancement and cost analysis. PLoS One. 9, e91791(2014).
- McGahon, M. K., et al. Diabetes downregulates large-conductance Ca2+-activated potassium beta 1 channel subunit in retinal arteriolar smooth muscle. Circulation Research. 100 (5), 703-711 (2007).
- Curtis, T. M., Scholfield, C. N. Nifedipine blocks Ca2+ store refilling through a pathway not involving L-type Ca2+ channels in rabbit arteriolar smooth muscle. Journal of Physiology. 532 (3), 609-623 (2001).
- Tumelty, J., et al. Endothelin 1 stimulates Ca2+-sparks and oscillations in retinal arteriolar myocytes via IP3R and RyR-dependent Ca2+ release. Investigative Ophthalmology & Visual Science. 52 (6), 3874-3879 (2011).
- Huynh, K. W., et al. Structural insight into the assembly of TRPV channels. Structure. 22 (2), 260-268 (2014).
- McGahon, M. K., Dawicki, J. M., Scholfield, C. N., McGeown, J. G., Curtis, T. M. A-type potassium current in retinal arteriolar smooth muscle cells. Investigative Ophthalmology & Visual Science. 46 (9), 3281-3287 (2005).
- McGahon, M. K., Zhang, X., Scholfield, C. N., Curtis, T. M., McGeown, J. G. Selective downregulation of the BKbeta1 subunit in diabetic arteriolar myocytes. Channels (Austin). 1 (3), 141-143 (2007).
- Ljubimov, A. V., et al. Basement membrane abnormalities in human eyes with diabetic retinopathy. Journal of Histochemistry and Cytochemistry. 44, 1469-1479 (1996).
- Roy, S., Maiello, M., Lorenzi, M. Increased expression of basement membrane collagen in human diabetic retinopathy. Journal of Clinical Investigation. 93, 438-442 (1994).
- Scholfield, C. N., McGeown, J. G., Curtis, T. M. Cellular physiology of retinal and choroidal arteriolar smooth muscle cells. Microcirculation. 14 (1), 11-24 (2007).
- Hinds, K., Monaghan, K. P., Frølund, B., McGeown, J. G., Curtis, T. M. GABAergic control of arteriolar diameter in the rat retina. Investigative Ophthalmology & Visual Science. 54 (10), 6798-6805 (2013).
- Torring, M. S., Aalkjaer, C., Bek, T. Constriction of porcine retinal arterioles induced by endothelin-1 and the thromboxane analogue U46619 in vitro decreases with increasing vascular branching level. Acta Ophthalmologica. 92 (3), 232-237 (2014).
- P, S. kov J. ensen, S, M. etz M. ariendal P. edersen, Aalkjaer, C., Bek, T. The vasodilating effects of insulin and lactate are increased in precapillary arterioles in the porcine retina ex vivo. Acta Ophthalmologica. 94 (5), 454-462 (2016).
Réimpressions et autorisations
