Présenté ici est un protocole pour déterminer le nombre de thrips et minuscules prédateurs de virus pirates dans les cultures sur plusieurs dates dans les expériences sur le terrain. Il est également illustré comment déterminer l'efficacité des tactiques de gestion contre les thrips et évaluer les avantages de la prédation par des bogues pirates minute.
Article de méthode
Échantillonnage pour estimer les espèces Frankliniella Flower Thrips et Orius Species Predators in Field Experiments
Dans cet article
Résumé
Résumé
La fleur occidentale thrips, Frankliniella occidentalis (Pergande), est un ravageur polyphagous qui a été répandu dans le monde entier. L'utilisation intensive d'insecticides pour tenter de contrôler ses populations élimine les ennemis naturels et les espèces de fleurs concurrentes, augmentant ainsi ses populations. Une situation insoutenable se développe avec des populations de ravageurs résistantes concomitantes, des éclosions secondaires de ravageurs et la dégradation de l'environnement. La lutte intégrée contre les ravageurs utilise la connaissance des ravageurs et des relations naturelles de l'ennemi pour mettre en œuvre des tactiques respectueuses de l'environnement et durables. Les insectes pirates minute sont les prédateurs les plus importants dans le monde entier de thrips. Ils peuvent supprimer et finalement contrôler les thrips de fleurs de l'espèce Frankliniella. Des échantillons de fleurs prélevés au moins une fois par semaine sont nécessaires pour comprendre la dynamique prédateur-proie. On montre ici l'échantillonnage des fleurs de légumes fruités et de plantes d'accompagnement pour estimer les densités des thrips individuels et des minuscules espèces de punaises pirates. Les données représentatives illustrent comment le protocole est utilisé pour déterminer l'efficacité des tactiques de gestion au fil du temps et comment évaluer les avantages de la prédation par des bogues pirates minute. Le protocole d'échantillonnage est également adaptable à l'échantillonnage des thrips et des minuscules insectes pirates chez d'autres hôtes d'espèces végétales.
Introduction
Les thrips de fleurs de l'Ouest, Frankliniella occidentalis (Pergande), a été l'un des premiers grands ravageurs qui a été répandu dans le monde entier en raison du mondialisme et le commerce international des produits agricoles. Les dommages économiques résultent directement de l'alimentation et de l'oviposition et indirectement par la transmission de virus pathogènes végétaux. Les populations envahissantes étaient déjà largement résistantes à la plupart des classes d'insecticides, et les tentatives de lutte contre les populations avec des insecticides n'ont fait qu'accroître les dégâts en éliminant d'importants ennemis naturels et des espèces concurrentes. Cette approche de lutte a déstabilisé les programmes de gestion et a entraîné des populations de ravageurs résistants, des éclosions de ravageurs secondaires et la dégradation de l'environnement1.
Des programmes intégrés de lutte contre les ravageurs ont été élaborés à partir de la connaissance des relations entre les ravageurs et les ennemis naturels et des effets des tactiques de gestion sur ces relations. On a longtemps cru que les caractéristiques de la population d'une colonisation et d'une croissance rapides dépassaient les capacités des ennemis naturels à réguler les thrips opportunistes des fleurs occidentales; c'est-à-dire, jusqu'à ce qu'il ait été démontré que la prédation des populations naturelles d'Orius insidiosus (Disons) a non seulement entraîné la suppression des populations de thrips de fleurs occidentales, mais aussi un déclin des populations vers l'extinction2. En outre, les thrips de fleur occidentaux sont principalement fleur-habitant, dans lequel il concurrence pour le pollen et d'autres ressources de fleur avec les thrips indigènes de fleur polyphagous.
Dans la plupart des États-Unis de l'Est, le principal concurrent indigène est Frankliniella tritici (Fitch), tandis que dans le sud de la Floride, la principale espèce concurrente est Frankliniella bispinosa (Morgan)3. Les thrips de fleur occidentaux souffrent de la résistance biotique forte en Floride des espèces indigènes des prédateurs et des espèces de thrips de fleur concurrentes ; cependant, c'est l'espèce dominante dans les habitats perturbés par les insecticides et d'autres tactiques qui excluent les thrips concurrents et les ennemis naturels. Par conséquent, un élément essentiel des programmes intégrés réussis de lutte antiparale pour les légumes fruités est l'augmentation de la prédation et de la concurrence3,4. Ces programmes ont été élaborés à partir de la connaissance de la dynamique prédateur-proie et de l'efficacité de diverses tactiques pour gérer les thrips et augmenter la résistance biotique. Ici, la méthodologie utilisée pour estimer les densités de thrips individuels et les espèces de virus pirates minute dans les fleurs de légumes fruitiers et les plantes d'accompagnement en Floride sont montrés. Les données sont utilisées pour déterminer l'efficacité des tactiques de gestion et évaluer les avantages de la prédation par des bogues pirates minute.
Conception du protocole d'échantillonnage des thrips de fleurs : informations de base
Lorsque les thrips de fleurs de l'Ouest sont apparus comme un ravageur majeur dans les années 19805, il a été nécessaire d'élaborer des procédures pour déterminer avec précision, efficacité et détermination précise du nombre d'espèces de thrips individuels dans les études sur le terrain. Les procédures décrites ici ont été développées à partir des connaissances acquises dans de nombreuses études menées pour comprendre la biologie et la gestion des thrips de fleurs. Parmi les exemples de ces études, mentionnons les travaux de Funderburk et coll.2, Hansen et al.6, Salguero Navas et al.7, Sutherland et al.,8, et Tyler-Julian et coll.9. Les concentrations d'espèces Frankliniella et de minuscules insectes pirates dans les fleurs sont basées sur le comportement et ne constituent pas un artefact d'applications insecticides ou d'échantillonnage6. Les estimations des populations de fleurs par rapport à d'autres parties végétales sont généralement suffisantes pour comprendre la dynamique locale des prédateurs et des proies sur un hôte végétal et évaluer les avantages des programmes de lutte biologique fondés sur les ratios prédateurs/proies. Cependant, la méthodologie développée pour les fleurs peut être adaptée à l'échantillonnage d'autres parties végétales. L'unité d'échantillon habituelle est une ou plusieurs fleurs. Le nombre d'échantillons nécessaires pour atteindre le niveau de précision souhaité est fonction de la densité de population et du nombre de fleurs dans l'unité d'échantillonnage.
Les espèces de Frankliniella ont tendance à être une distribution agrégée dans les fleurs, et les populations sont généralement concentrées dans les fleurs de la canopée végétale supérieure7. Pour la plupart des études, les fleurs sont choisies au hasard dans la moitié supérieure de la plante. Les techniques relatives pour enlever les thrips des fleurs, y compris le lavage liquide,le délogement mécanique, ou la dessiccation, sont inexactes et imprécises 8. Pour cette raison, une technique de comptage direct et d'estimation absolue est utilisée. Les thrips sont de petits organismes d'environ 2 mm à Iength, et la microscopie est habituellement nécessaire pour déterminer avec précision l'espèce. Les fleurs constituant une unité d'échantillon sont placées dans une fiole de 70% d'alcool. Une fois les échantillons prélevés, les flacons de chaque parcelle sont retournés au laboratoire pour l'extraction des thrips et des insectes pirates minute et une détermination précise du sexe, des espèces et du stade de chacun. Les expériences consistent en des parcelles de terrain répliquées qui sont utilisées pour évaluer l'efficacité des traitements pour supprimer les thrips et les avantages de la prédation par des bogues pirates minute. Les échantillons de fleurs sont prélevés au moins une fois par semaine pendant la période de floraison de l'hôte de la plante. Randomized complète conceptions expérimentales de bloc sont utiles pour supprimer des différences d'erreur expérimentales dans les thrips et les densités de bogues pirates minute entre les blocs. Les arrangements de traitement de sous-intrigue sont utiles pour réduire les effets inter-intrigue des tactiques de gestion qui affectent le mouvement des thrips9.
Traitement et analyse d'échantillons de fleurs : informations de base
Avant les années 1990, les clés des espèces de thrips ont été développées pour être utilisées par des spécialistes en taxonomique, qui ont placé des thrips pour l'identification sur des lames de microscope à l'aide d'un de plusieurs supports de montage. Les chercheurs qui étudiaient la biologie et la gestion des thrips n'étaient pas des spécialistes en taxonomique, et les spécialistes en taxonomique n'ont pas participé aux études. Typiquement, les thrips dans les échantillons de ces études ont été regroupés dans le genre, la famille, le sous-ordre, ou les niveaux d'ordre de classification. Après la propagation des thrips de fleur occidentaux, il y a eu 1) prolifération rapide de la recherche concernant la biologie et la gestion de thrips et 2) la reconnaissance par des chercheurs pour la nécessité d'identifier des espèces de thrips et de développer un système efficace pour traiter des échantillons.
Dans des études menées au milieu des années 1990 sur la biologie des thrips, les thrips adultes des échantillons ont été placés sur des lames de microscopeet identifiés aux espèces par le spécialiste en taxonomie R. J. Beshear (p. ex. Salguero Navas et al.7 ). Les larves n'ont été identifiées au genre qu'en raison d'un manque de clés d'identification larvaires disponibles à ce moment-là. Le montage de diapositives a été coûteux et laborieux, et un système plus efficace a été développé2. Dans des études ultérieures, les thrips dans les échantillons ont été extraits des fleurs dans un plat Petri contenant 70% d'alcool, et les mâles et les femelles dans le plat Petri ont été identifiés à des espèces sous stéréoscopie. La plupart de nos recherches portent sur des espèces de Frankliniella. Les adultes de ces espèces ont été séparés à des espèces sous le stéréoscope en utilisant des différences dans leur chaetotaxy sur la surface dorsal du pronotum, la tête et les antennes10,11,12.
Une expertise supplémentaire en taxonomie thrips a été acquise pour reconnaître et identifier d'autres genres et espèces thrips dans les échantillons. Il existe de nombreuses espèces d'Orius dans le monde qui sont d'importants prédateurs des thrips. Deux espèces, O. insidiosus et O. pumilio (Champion), sont sympathiques dans une grande partie de la Floride13. Les adultes de ces espèces sont séparés par les caractéristiques de couleur du segment des antennes basales, le fémora de la patte postérieure et le cuneus sur l'aile. Les espèces et les sexes de Thrips diffèrent dans leur biologie et leur comportement; par conséquent, les données pour chacun sont généralement analysées séparément. Étant donné que les populations de thrips dans les fleurs ont un modèle agrégé de distribution, les données ont besoin d'être transformations pour stabiliser les écarts entre les traitements. Les moyens de traitement sont comparés à l'aide de l'analyse de la variance comme approprié pour la conception expérimentale, et les données sont analysées pour chaque date individuelle et/ ou pour les données mises en commun à la date2,9. L'analyse des effets sur les dates individuelles est importante lorsque les différences de traitement varient selon la date. Le rapport du total des thrips (adultes et larves) par minute bug pirate (adultes et nymphes) est utilisé pour évaluer l'efficacité de la lutte biologique avec des insectes pirates minute dans les études sur le terrain en Floride supprimer les populations de thrips à un rapport d'environ un prédateur pour tous les 180 thrips2,9.
Protocole
1. Expérience sur le terrain pour déterminer les effets du paillis réfléchissant aux UV, du kaolin et des plantes d'accompagnement sur les thrips de fleurs et leur prédateur minuscule de bogue de pirate
- Établir une expérience sur le terrain avec un arrangement de traitement split-split-plot dans un bloc expérimental randomisé complet avec le type de paillis comme traitements de parcelle entière, kaolin et pas de kaolin comme traitements de sous-intrigue, et les plantes de compagnie et pas de plantes d'accompagnement comme traitements sous-sous-intrigue (Figure1A, B)9,14.
- Disposition des blocs de tomates ou de poivre qui sont chacun au moins 6 m de large et 72 m de long.
- Au hasard se sont couchés dans chaque bloc des parcelles entières de paillis noir et UV-réfléchissant, avec chaque parcelle entière composée de six lits de paillis surélevés d'au moins 36 m de long.
- Plantez une rangée linéaire de tomates tous les 45 cm ou deux rangées linéaires de poivrons tous les 30 cm dans les quatre lits intérieurs de chaque parcelle entière.
- Traitement Kaolin
- Divisez au hasard chaque parcelle entière en sous-intrigues égales de kaolin ou pas de traitements de kaolin.
- Appliquer le kaolin une ou deux fois par semaine au taux de 7,0 kg/ha sur les plants de tomates ou de poivrons dans les sous-parcelles assignées pour recevoir un traitement au kaolin.
- Plantes d'accompagnement
- Divisez au hasard chaque sous-intrigue en sous-sous-intrigues égales de plantes d'accompagnement ou de traitements de plantes complémentaires.
- Plantez deux rangées linéaires de Bidens alba (L.) tous les 30 cm ou une rangée linéaire d'annuus L. helianthus tous les 30 cm dans les deux lits extérieurs de chaque traitement sous-sous-intrigue avec des plantes d'accompagnement.
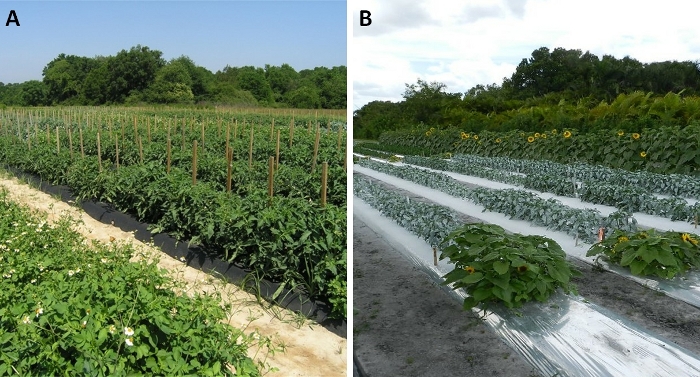
Figure 1 : Exemple d'étude expérimentale sur le terrain.
(A) Randomized conception complète de bloc pour évaluer les effets séparés et interactifs des plantes de compagnie, paillis, et des effets de kaolin sur les thrips de fleur et les bogues de pirate minute. (B) Bidens alba (L.) évalué comme une espèce de plante compagnon avec la tomate comme la culture9. Helianthus annuus L. évalué comme une espèce de plante compagnon avec du poivre que la culture14. Veuillez cliquer ici pour voir une version plus grande de ce chiffre.
2. Protocole d'échantillonnage des thrips de fleurs
- Préparer des flacons d'échantillons de 50 ml avant d'aller aux parcelles expérimentales.
- Placez une étiquette avec le paillis, le kaolin et le traitement des plantes complémentaires, le numéro de bloc et la date de l'échantillon à l'extérieur et à l'intérieur de chaque flacon.
- Mettre exactement 30 ml d'alcool à 70 % dans chaque flacon de 50 ml.
- Placer les flacons dans un plateau.
- Emmenez les plateaux sur le site du terrain expérimental.
- Goûtez les fleurs pour les thrips et les insectes pirates minute.
- Attribuez au hasard les plants de tomates ou de poivrons à échantillonner dans chaque sous-sous-intrigue.
- Échantillon entre le milieu de la matinée et le milieu de l'après-midi.
- Prélever les échantillons de la moitié supérieure de la plante.
- Retirez le couvercle de flacon. À l'aide d'un rasoir à tranchant pointus ou de ciseaux, retirer soigneusement la fleur de la plante. Placez rapidement la fleur dans le flacon préétiqueté approprié. Poussez la fleur dans l'alcool de la fiole (Figure 2). Remplacer le couvercle.
- Recueillir 10 fleurs par échantillon. Assurez-vous que chaque flacon est hermétiquement scellé, puis secouez chaque flacon pour s'assurer que les fleurs sont dans l'alcool.
- Remettre les plateaux avec des échantillons au laboratoire pour le stockage. Pour s'assurer que les échantillons ne se détériorent pas avant le traitement, gardez les échantillons au frais et au sec. Réfrigérer, si possible, surtout pour les échantillons qui ne sont pas traités rapidement.
- Répéter l'échantillonnage de chaque sous-sous-parcelle au moins une fois par semaine pendant la période de floraison de la culture.
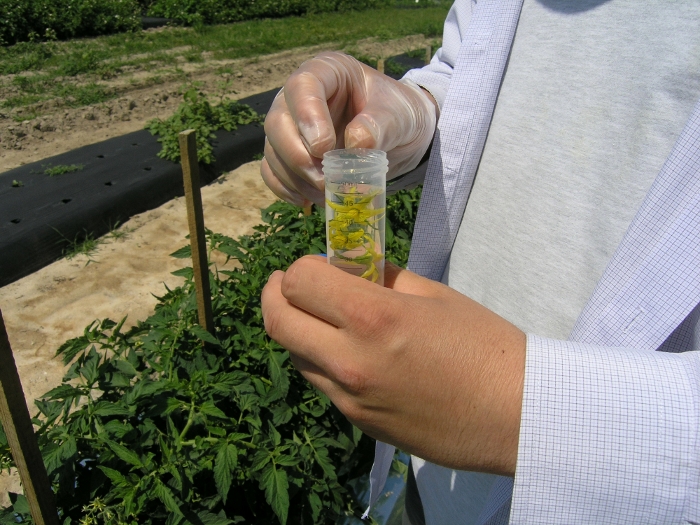
Figure 2 : Technique d'enlèvement d'échantillons.
Un échantillon de 10 fleurs de tomate étant recueillies à partir d'une parcelle sous-sous-sous-sous dans l'expérience de poussée de tomate9. Veuillez cliquer ici pour voir une version plus grande de ce chiffre.
3. Traitement d'échantillons en laboratoire
- Extraire les thrips et les insectes pirates minute des fleurs dans chaque échantillon.
- Retirer l'échantillon du réfrigérateur et du plateau sans perturber le contenu.
- Retirer le couvercle du flacon et extraire soigneusement avec une pipette tout excès d'alcool au-dessus des fleurs.
- Refermer la fiole et secouer pour déloger les thrips et les insectes pirates minute dans les fleurs.
- Ouvrez le flacon et versez le contenu dans un plat Petri. Rincer l'intérieur de la fiole avec 70% d'alcool et verser le contenu dans le plat Petri. Assurez-vous que tous les thrips et les insectes pirates minute dans le flacon sont rincés dans le plat Petri.
- Disséquer chaque fleur avec des forceps et rincer à 70% d'alcool pour s'assurer que tous les thrips et les insectes pirates minute ont été délogés. Retirer et jeter les parties de fleurs du plat Petri (Figure 3).
- Transférer le plat Petri sur la plate-forme d'un stéréoscope avec un grossissement de 40x à 150x.
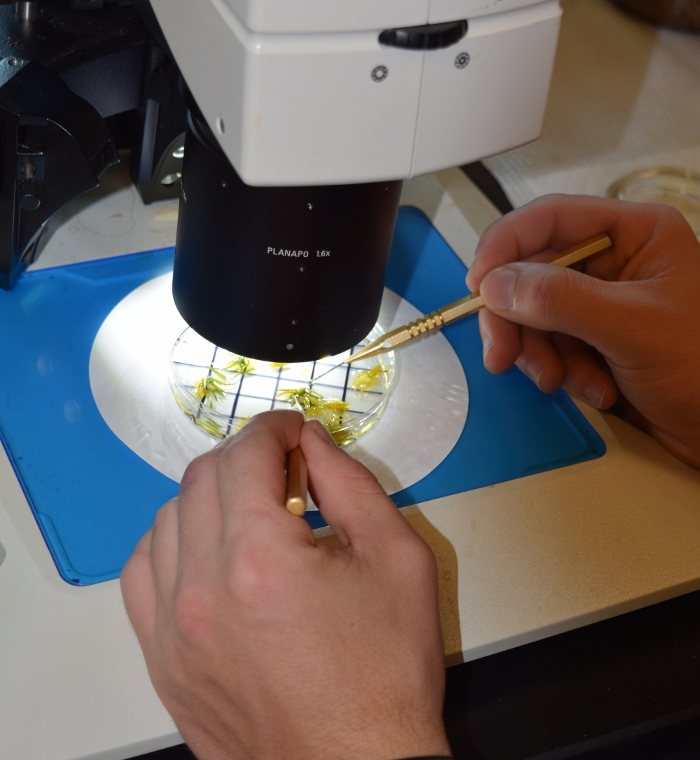
Figure 3 : Extraire les thrips et les minuscules insectes pirates des fleurs.
Un échantillon de 10 fleurs de tomates versés dans un plat Petri pour le traitement pour déterminer le nombre de thrips et de bugs pirate minute. Veuillez cliquer ici pour voir une version plus grande de ce chiffre.
- Identifiez et comptez les thrips de fleurs dans les échantillons.
- Identifiez et comptez dans chaque grille le nombre de mâles et de femelles adultes de chaque espèce de thrips de fleurs et le nombre de larves d'espèces Frankliniella.
- Identifier les espèces de thrips de fleurs adultes en Floride en fonction des setae sur le pronotum, la tête et le deuxième segment d'antenne10,11,12.
- Séparer les adultes de F. bispinosa des adultes de F. tritici et F. occidentalis par la robustesse supplémentaire des deux setae sur la marge dorsal antérieure du deuxième segment d'antenne (Figure 4).
- Séparez l'adulte F. occidentalis de ceux de F. bispinosa et F. tritici par les longueurs presque égales des setae angulaires marginaux et antérieurs antérieurs sur le pronotum et par le quatrième setae postoculaire plus long sur la tête ( Figure 4).
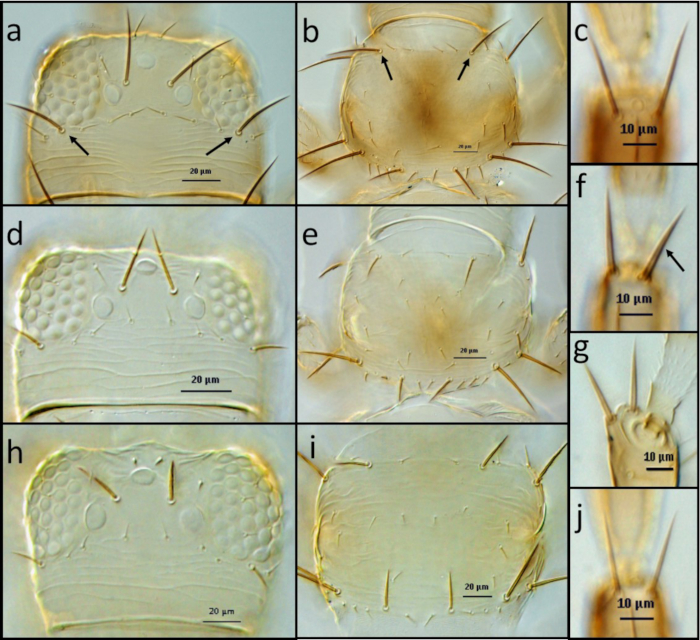
Figure 4 : Exemples de caractères morphologiques pour identifier les thrips.
(A,B,C) F occidentalis: tête (A), flèches indiquent postoculaire setae paire IV; pronotum (B), flèches indiquent paire de longues setae antéromarginal; distal dorsal setae du segment d'antenne II (B). (D,E,F,G) . F. bispinosa: tête (D); pronotum (E); distal dorsal setae of antenna segment II (F,G), arrow indicates stout setae (F), vue latérale de stout setae (G). (H,I,J). F. tritici: tête (H); pronotum (I); distal dorsal setae du segment d'antenne II (J). Veuillez cliquer ici pour voir une version plus grande de ce chiffre.
- Identifiez et comptez les minuscules bogues pirates dans les échantillons de Floride.
- Identifier et compter dans chaque grille le nombre d'O. insidiosus adultes et O. pumilio et le nombre d'espèces d'Orius nymphales13,15.
- Identifiez l'O. insidiosus adulte par les segments d'antenne basal bruns, par la fémora qui ont des marques foncées, et par le cuneus qui est brun foncé.
- Identifiez l'adulte O. pumilio par les segments jaunes des antennes basales, le fémora jaune ou de couleur paille, et par le cuneus avec de la paille pâle ou de couleur brun clair.
- Ajoutez les nombres de chaque grille pour déterminer le nombre total de mâles et de femelles adultes de chaque espèce de thrips de fleurs, le nombre de larves d'espèces Frankliniella, le nombre de minuscules insectes pirates adultes de chaque espèce et le nombre de nymphes de virus pirates minute dans l'échantillon.
- Sélectionnez des bons représentatifs de thrips de fleurs et de minuscules adultes de bogues pirates à partir des échantillons. Étiquette par date, hôte de l'usine, emplacement et collecteur. Curate pour la conservation à long terme.
- Transférez les données de chaque échantillon à une feuille de calcul qui comprend la date de l'échantillon, le traitement et la réplication.
- Créez un fichier de données qui contient les données de chaque échantillon. Inclure l'emplacement expérimental, la conception expérimentale, et les quantités et les dates de chaque pratique culturelle utilisée pour établir et maintenir l'expérience.
- Maintenir et gérer le fichier de données avec une sauvegarde appropriée pour un accès à long terme.
Résultats
Les données recueillies dans l'étude par Tyler-Julian et coll.9 peuvent être utilisées pour démontrer les effets distincts et combinés des facteurs de poussée (c.-à-d. l'application de paillis et de kaolin à reflet ultraviolet) et du facteur d'attraction (c.-à-d. l'aiguille espagnole de la plante compagnon, B . alba) sur la dynamique de population des mâles et des femelles adultes F. occidentalis en fleurs de tomate (Figure 1A). Les traitements de paillis en plastique agricole dans l'expérience ont été utilisés pour former le lit du système de paillis en plastique surélevé qui est typique du système de production utilisé pour cultiver des légumes de grande valeur en Floride. Le mécanisme du paillis ultraviolet-réfléchissant dans la lutte antiparasitaire est une dissuasion visuelle qui perturbe la recherche de l'hôte par les thrips adultes. L'application de Kaolin sur les plants de tomates reflète également assez de lumière ultraviolette pour dissuader les adultes thrips. Par conséquent, une parcelle fractionnée randomisée conception complète de bloc a été employée dans l'expérience pour réduire l'interférence d'entre-intrigue sur le mouvement de thrips résultant des propriétés ultraviolettes-réfléchissantes du paillis et des traitements de kaolin, avec le paillis traitement (ultraviolet-réfléchissant par rapport au paillis noir conventionnel) comme l'ensemble de la parcelle, traitement de kaolin (deux fois par semaine équiplant de kaolin contre pas de kaolin) comme sous-intrigue, et traitement des plantes d'accompagnement (plantes d'accompagnement vs pas de compagnon) comme sous-sous-intrigue. La taille de la sous-sous-parcelle était de six lits par 9 m, les quatre lits intérieurs de chaque sous-sous-intrigue se composant d'une rangée linéaire de tomates avec un espacement de 45 cm entre les plantes, pour un total de 80 plantes par sous-parcelle. Deux rangées d'aiguilles espagnoles ont été plantées dans chacun des deux lits externes dans les sous-sous-intrigues avec l'usine compagnon avec un espacement de 30 cm à l'intérieur et entre les rangées pour un total de 128 plantes d'accompagnement par sous-sous-parcelle.
Deux échantillons de 10 fleurs de tomates ont été prélevés dans chaque sous-sous-intrigue à chacune des 13 dates en 2011 pendant la période de floraison de la récolte de tomates, et le nombre de F. occidentalis mâles et femelles adultes dans chaque échantillon a été déterminé (figure 5). Les effets du paillis, du kaolin et de l'usine connexe sur chaque sexe ont été analysés à l'aide d'une analyse de la variance pour une conception complète randomisée de bloc pour un arrangement de traitement de parcelle fractionné pour des données à travers la date de l'échantillon à l'aide d'un modèle mixte (voir Tyler-Julian et al. 9 pour une description complète de l'analyse de la variance et des résultats). Les principaux effets du paillis, du kaolin et de la plante d'accompagnement étaient importants pour les thrips mâles de fleur de l'Ouest (p lt; 0.01, 0.001, et 0.001, respectivement), alors que les effets interactifs du paillis X kaolin, plante de compagnon de paillis X, kaolin X plante compagnon, et paillis X kaolin X interactions plantes compagnons n'étaient pas significatives (p 'gt; 0.05). Ces résultats ont montré que chacun des principaux effets a réduit le nombre d'adultes mâles F. occidentalis, et que les effets de chaque tactique ont été additifs lorsqu'ils sont combinés les uns avec les autres.
L'effet principal du paillis a été significatif pour la femelle F. occidentalis (p lt; 0.01), tandis que les principaux effets du kaolin et des plantes d'accompagnement n'étaient pas significatifs pour la femelle F. occidentalis (p 'gt; 0.05). Par conséquent, le paillis ultraviolet-réfléchissant a réduit le F. occidentalis femelle dans les fleurs de tomate, mais le kaolin et la plante d'accompagnement n'ont pas fait. Cependant, l'interaction de paillis X kaolin était significative (p lt; 0.05) montrant que les effets combinés du paillis ultraviolet-réfléchissant et du kaolin ont réduit le F. occidentalis femelle plus que l'une ou l'autre tactique seule, alors que le kaolin s'appliquait à tomate sur paillis noir n'a pas réduit le nombre de F. occidentalis femelle. Les effets interactifs de la plante compagnon de paillis X, de la plante compagnon de kaolin X, et du paillis X kaolin X d'interactions de plante de compagnon pour les femelles F. occidentalis n'étaient pas significatifs (p 'gt; 0.05).
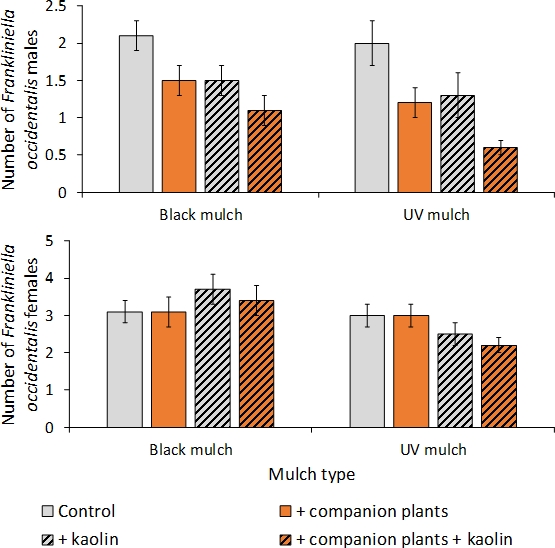
Figure 5 : Exemple d'analyse des données par rapport à la date de l'échantillon.
Le nombre moyen par 10 fleurs de tomates (SEM) de F. occidentalis mâle et femelle adulte dans le paillis, le kaolin, et les traitements de plantes d'accompagnement pour les données d'échantillon regroupés sur 13 dates en 2011 dans une expérience push-pull menée dans le comté de Gadsden, en Floride. Ce chiffre a été modifié à partir de Tyler-Julian et coll.9
L'interaction de la date de l'échantillon de paillis X a été significative dans l'expérience en 2011 pour les adultes F. occidentalis mâles et femelles (p lt; 0,01 et 0,001, respectivement)9. Cela a révélé que le paillis ultraviolet-réfléchissant réduit les nombres de thrips de fleurs sur certaines, mais pas toutes, dates d'échantillon. Par conséquent, d'autres analyses ont été effectuées pour évaluer les effets du paillis sur les dates d'échantillonnage individuelles. L'interaction a montré que le paillis ultraviolet-réfléchissant était efficace pour réduire le nombre de thrips de fleurs au début de la saison, mais il n'y avait aucune signification sur les dates d'échantillon individuelles pendant la mi- ou la fin de la saison (figure 6).
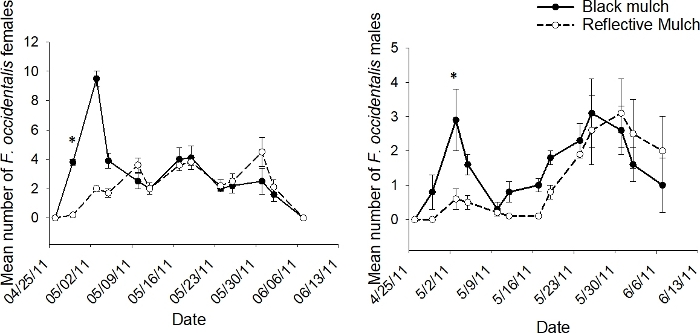
Figure 6 : Exemple de dynamique de population pour le traitement de parcelle entière.
Le nombremoyen de f. occidentalis mâles et femelles adultes pour 10 plants de tomates pour 10 plants de tomates à chaque date d'échantillonnage de 2011 dans l'ensemble du traitement de la parcelle de paillis noir et ultraviolet pour les données mises en commun entre le kaolin et la plante connexe traitements dans le cas des expériences de traction poussée menées dans le comté de Gadsden, en Floride (indique une importance supérieure à 95 % selon l'analyse de la variance effectuée pour les dates d'échantillonnage individuelles; d.f. - 1, 2). Ce chiffre a été modifié à partir de Tyler-Julian et coll.9. Veuillez cliquer ici pour voir une version plus grande de ce chiffre.
L'interaction de kaolin X date de l'échantillon n'était pas significative en 2011 pour le mâle ou la femelle F. occidentalis (p 'gt; 0.05)9. Comme indiqué précédemment, les analyses des données mises en commun sur la date de l'échantillon ont révélé que le kaolin n'affectait pas de façon significative le nombre de F. occidentalis féminins, tandis que les nombres masculins de F. occidentalis étaient considérablement réduits. L'absence d'une interaction significative entre les dates de l'échantillon de kaolin X dans les analyses pour les données mises en commun au cours de la date de l'échantillon suggère que les résultats pour chaque sexe étaient uniformes selon la date de l'échantillon (figure 7).
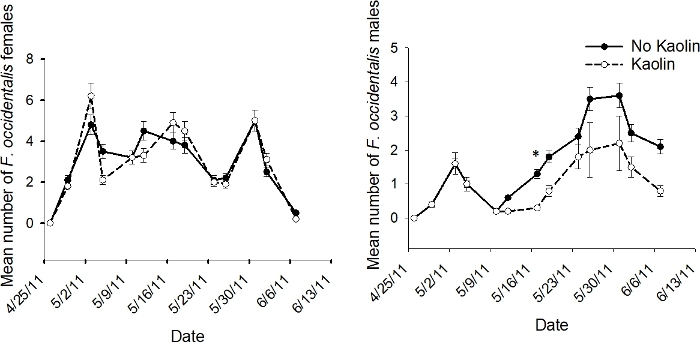
Figure 7 : Exemple de dynamique de population pour le traitement de sous-intrigue.
Le nombremoyen de f. occidentalis mâles et femelles pour 10 tomates (n - 12 échantillons) de F. occidentalis mâle et femelle adulte à chaque date d'échantillonnage de 2011 dans le traitement sous-intrigue du kaolin et de l'absence de kaolin pour les données mises en commun entre les traitements des plantes d'accompagnement dans le push-pull des expériences menées dans le comté de Gadsden, en Floride (indique une importance supérieure à 95 % selon l'analyse de la variance effectuée pour les dates d'échantillonnage individuelles; d.f. - 1, 4). Ce chiffre a été modifié à partir de Tyler-Julian et coll.9. Veuillez cliquer ici pour voir une version plus grande de ce chiffre.
L'interaction de la date de l'échantillon de la plante X a été significative en 2011 pour le mâle F. occidentalis (p lt; 0,05), mais pas pour la femelle F. occidentalis (p 'gt; 0.05)9. Les analyses effectuées pour évaluer les effets des plantes d'accompagnement sur les dates d'échantillonnage individuelles ont révélé que les plantes d'accompagnement réduisaient le nombre adulte de F. occidentalis aux dates d'échantillonnage de fin de saison, mais jamais aux dates d'échantillonnage de début ou de mi-saison (figure8 ).
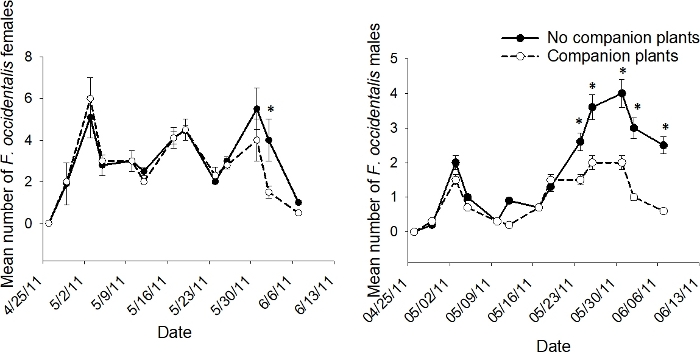
Figure 8 : Exemple de dynamique de population pour le traitement sous-intrigue.
Le nombremoyen de f. occidentalis mâles et femelles adultes pour 10 plants de tomates pour 10 tomates à chaque date d'échantillonnage de 2011 dans le traitement sous-sous-intrigue d'une plante d'accompagnement et d'aucune plante d'accompagnement dans les expériences de traction poussée menées à Gadsden Comté de la Floride (indique une importance supérieure à 95 % selon l'analyse de la variance effectuée pour les dates d'échantillonnage individuelles; d.f. 1, 8). Ce chiffre a été modifié à partir de Tyler-Julian et coll.9. Veuillez cliquer ici pour voir une version plus grande de ce chiffre.
Les données recueillies sur les fleurs de la plante compagnon dans l'étude de Tyler-Julian et coll.14 peuvent être utilisées pour démontrer la relation dynamique entre les insectes pirates minuscules et ses proies thrips dans les fleurs (Figure 1B). Comme dans l'étude Tyler-Julian et coll.9, les objectifs étaient de déterminer les effets distincts et combinés des facteurs de poussée (c.-à-d. l'application de paillis et de kaolin à reflet ultraviolet) et d'un facteur d'attraction (c.-à-d. la plante connexe) sur la population dynamique des mâles et des femelles adultes de l'espèce Frankliniella dans les fleurs cultivées. Dans l'étude Tyler-Julian et coll.14, l'espèce prédominante de thrips de fleurs était F. bispinosa dans la plante compagnon H. annuus et dans la culture de poivre (-gt;99% du total des thrips dans les fleurs). Les thrips ont rapidement colonisé les tournesols et les fleurs de poivre, et leur nombre était le plus grand peu de temps après le début de la floraison (Figure 9). Les populations de thrips ont diminué au fil du temps à mesure que le nombre de minuscules insectes pirates augmentait. Le rapport prédateur-proie a illustré la capacité du prédateur à supprimer les populations de thrips avec la quasi-extinction des populations de thrips se produisant à des ratios de '1 prédateur par 40 thrips.
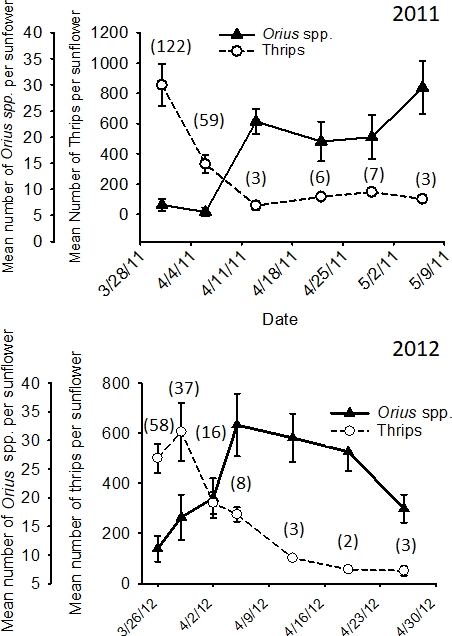
Figure 9 : Exemple d'évaluation des avantages de la prédation.
Nombre moyen (-SEM) de thrips totaux (adultes et larves) et total Orius spp. (adultes et nymphes) par tête de fleur d'annuus Helianthus dans des expériences menées en 2011 et 2012 dans le comté de Palm Beach, en Floride (le nombre de proies thrips totales par prédateur à chaque date indiquée entre parenthèses). Ce chiffre a été adapté à partir des données rapportées dans Tyler-Julian et al.14 avec la permission d'Oxford University Press.
Discussion
Des protocoles d'échantillonnage avec des niveaux de précision souhaités pour estimer les densités de population des thrips de fleurs ont été développés pour les cultures de la Floride au cours de plus de trois décennies de recherche sur le terrain. Des études ont été menées pour comprendre les aspects importants de la biologie des thrips floraux qui affectent les estimations de la population. Par exemple, des études ont été menées pour comprendre les effets sur les estimations de l'heure de la journée lors de l'échantillonnage16, l'emplacement de l'échantillon dans le champ16, l'emplacement de l'échantillon sur les plantes individuelles6,16, les modèles d'agrégation en fleurs7, et la couleur de fleur17. Ces facteurs ont influencé les estimations de la population; ainsi, les décisions de où, quand, et comment sont d'une importance critique lors de la conception du protocole d'échantillonnage dans les études de recherche futures.
Les adultes et les nymphes des insectes pirates minute sont très anthésifs, et le prédateur s'agrége avec sa proie d'une manière dépendante de la densité en préférant les mêmes fleurs également préférées par les thrips17. Ils exploitent également les indices de proies ou de plantes endommagées par les proies pour localiser les thrips. Les adultes se déplacent rapidement entre les fleurs, un comportement qui améliore leur capacité à suivre les populations locales de proies thrips dans l'espace et le temps18. Par conséquent, les protocoles d'échantillonnage élaborés pour estimer les populations de thrips devraient être utilisés dans des études futures lors de l'estimation des populations de minuscules insectes pirates. Minute insectes pirates sont des prédateurs efficaces des adultes et des larves de différentes espèces Frankliniella thrips fleur19. Le nombre de prédateurs par rapport au nombre total de proies thrips fournit la meilleure estimation de la capacité des insectes pirates minute pour supprimer et contrôler les populations mixtes de thrips dans les fleurs. Cela devrait être pris en considération lors de l'analyse des données dans les études futures.
Les adultes de l'espèce Frankliniella colonisent rapidement les cultures hôtes une fois la floraison commencée, et la croissance rapide de la population suit en l'absence de mortalité des ennemis naturels2,18,19. Sur un bon hôte végétal pour les prédateurs et les thrips proies comme le tournesol, le nombre de thrips sont plus grands peu de temps après l'initiation des fleurs, suivie par des déclins dans les populations que les insectes pirates minute augmenter (Figure 9). Les populations de minuscules insectes pirates demeurent même si les thrips sont presque éteints. Pour bien comprendre cette relation dynamique prédateur-proie, il est nécessaire d'échantillonner fréquemment tout au long de la période de floraison de la culture. La même chose est vraie lors de l'étude de l'efficacité d'autres types de tactiques, car ils peuvent être efficaces à certaines dates et non pas d'autres. Une ou deux fois par semaine, on a effectué un échantillonnage hebdomadaire pendant toute la période de floraison afin d'évaluer les effets de multiples tactiques dans le système de traction à l'étude dans Tyler-Julian et coll.9,14.
Frankliniella est le deuxième plus grand genre de la famille Thripidae, et il ya une grande quantité de littérature décrivant les stades de la vie adulte20. Un complexe d'espèces habite des fleurs qui sont spécifiques à différentes espèces végétales hôtes et emplacements géographiques. Par conséquent, l'identification par des experts de spécimens préparés par des diapositives à partir d'un sous-ensemble des échantillonnages initiaux est essentielle. Ensuite, dans n'importe quel hôte végétal et emplacement géographique donné, les caractères taxonomiques uniques aux adultes de chaque espèce peuvent être choisis afin que l'espèce puisse être déterminée dans des études futures sans aller à la procédure laborieuse et coûteuse de placer chacun sur le microscope diapositives pour être visionnées au microscope composé. Ils peuvent simplement être visualisés et identifiés sous un stéréoscope. (Dans certaines situations inhabituelles, les caractères morphologiques séparant deux espèces sont si semblables qu'ils ne peuvent pas être séparés sous le stéréoscope.) Les méthodes décrites ici pour les espèces de thrips de fleurs communes dans la plupart des cultures en Floride devraient être adaptées et utilisées à d'autres endroits géographiques lors du traitement du grand nombre d'échantillons nécessaires dans les études sur le terrain pour déterminer l'efficacité des tactiques de gestion et de évaluer les avantages de la prédation par des bogues pirates minuscules.
Déclarations de divulgation
Les auteurs n'ont rien à révéler.
Remerciements
Le soutien a été fourni par les subventions de bloc de culture de spécialité du ministère de l'Agriculture de la Floride et des numéros de services aux consommateurs 01856 et 024049. Des accords de coopération supplémentaires ont été obtenus entre l'USDA-ARS et les numéros 58-6618-2-096 et 58-6618-4-035 de l'Université de Floride. Nous remercions les anciens étudiants, postdoctorants et collaborateurs qui ont contribué de tant de façons à notre recherche pour comprendre les facteurs qui influent sur la dynamique de la population des thrips de fleurs.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Alcool | Toute source | 70 % éthanol ou isopropyle | |
| Tube à centrifuger | Fisher Scientific Co. | 06-443-18 | Pince à capuchon plat et plateau |
| Fisher | Scientific Co. | 08-885 | Pointe moyenne |
| Argile kaolin | Novasource | Surround WP | 95 % kaolin |
| Pasteur pipet | Fisher Scientific Co. | 13-678-6A | jetable de 5 ¾ pouces |
| Fisher Scientific Co. | FB0875711A | Avec grille | |
| Sondes/autodirecteurs | Fisher Scientific Co. | 08-995 | Scalpel à extrémité courbée de 6 pouces |
| Fisher Scientific Co. | 14-840-00 | ||
| Excel International Stéréomicroscope | Leica Microsystems | M Series | 40X et supérieur |
| Paillis réfléchissant UV | Intergro | Metalized |
Références
- Morse, J. G., Hoddle, M. S. Invasion biology of thrips. Annual Review of Entomology. 51, 67-89 (2006).
- Funderburk, J., Stavisky, J., Olson, S. Predation of Frankliniella occidentalis (Thysanoptera: Thripidae) in field peppers by Orius insidiosus (Hemiptera: Anthocoridae). Environmental Entomology. 29, 376-382 (2000).
- Funderburk, J., Frantz, G., Mellinger, C., Tyler-Julian, K., Srivastava, M. Biotic resistance limits the invasiveness of the western flower thrips, Frankliniella occidentalis (Thysanoptera: Thripidae), in Florida. Insect Science. 23, 175-182 (2016).
- Demirozer, O., Tyler-Julian, K., Funderburk, J., Leppla, N., Reitz, S. Frankliniella occidentalis (Pergande) integrated pest management programs for fruiting vegetables in Florida. Pest Management Science. 68, 1537-1545 (2012).
- Kirk, W. D. J., Terry, L. I. The spread of the western flower thrips Frankliniella occidentalis (Pergande). Agricultural and Forest Entomology. 5, 301-310 (2003).
- Hansen, E. A., et al. Within-plant distribution of Frankliniella species (Thysanoptera: Thripidae) and Orius insidiosus (Heteroptera: Anthocoridae) in field pepper. Environmental Entomology. 32, 1035-1044 (2003).
- Salguero Navas, V. E., Funderburk, J. E., Mack, T. P., Beshear, R. J., Olson, S. M. Aggregation indices and sample size curves for binomial sampling of flower-inhabiting Frankliniella species (Thysanoptera: Thripidae) on tomato. Journal of Economic Entomology. 87, 1622-1626 (1994).
- Sutherland, A. M., Parrella, M. P. Accuracy, precision, and economic efficiency for three methods of thrips (Thysanoptera: Thripidae) population density assessment. Journal of Economic Entomology. 104, 1323-1328 (2011).
- Tyler-Julian, K., Funderburk, J., Srivastava, M., Olson, S., Adkins, S. Evaluation of a push-pull system for the management of Frankliniella species (Thysanoptera: Thripidae) in tomato. Insects. 9, 187(2018).
- Arthurs, S. P., Kok-Yokomi, M. L., Smith, H. Florida flower thrips (suggested common name) Frankliniella bispinosa Morgan (Insecta: Thysanoptera: Thripidae). University of Florida, IFAS, EDIS Document EENY639. , (2018).
- Cluever, J. D., Smith, H. A., Funderburk, J. E., Frantz, G. Western flower thrips (Frankliniella occidentalis [Pergande). University of Florida, IFAS, EDIS Document ENY883. , (2018).
- Sprague, D., Funderburk, J., Lucky, A. Flower thrips, Frankliniella tritici (Fitch). University of Florida, IFAS, EDIS Document EENY720. , (2018).
- Herring, J. L. The genus Orius of the Western Hemisphere (Hemiptera: Anthocoridae). Annals of the Entomological Society of America. 59, 1093-1109 (1966).
- Tyler-Julian, K., Funderburk, J., Frantz, G., Mellinger, C. Evaluation of a push-pull strategy for the management of Frankliniella bispinosa (Thysanoptera: Thripidae) in bell pepper. Environmental Entomology. 43, 1364-1378 (2014).
- Shapiro, J. P., Shirk, P. D., Kelley, K., Lewis, T. M., Horton, D. R. Identity of two sympatric species of Orius (Hemiptera: Heteroptera: Anthocoridae). Journal of Insect Science. 10, 189(2010).
- Salguero Navas, V. E., Funderburk, J. E., Beshear, R. J., Olson, S. M., Mack, T. P. Seasonal patterns of Frankliniella spp. (Thysanoptera: Thripidae) in tomato flowers. Journal of Economic Entomology. 84, 1818-1822 (1991).
- Funderburk, C., et al. Population dynamics of Frankliniella bispinosa (Thysanoptera: Thripidae) and the predator Orius insidiosus (Hemiptera: Anthocoridae) as influenced by flower color of Lagerstroemia (Lythraceae). Environmental Entomology. 44, 668-679 (2015).
- Ramachandran, S., Funderburk, J. E., Stavisky, J., Olson, S. Population abundance and movement of Frankiliniella thrips and Orius insidiosus in field pepper. Agricultural and Forest Entomology. 3, 129-137 (2001).
- Baez, I., Reitz, S., Funderburk, J. Predation by Orius insidiosus (Heteroptera: Anthocoridae) on life stages and species of Frankliniella flower thrips (Thysanoptera: Thripidae) in pepper flowers. Environmental Entomology. 33, 662-670 (2004).
- Nakahara, S. Annotated list of the Frankliniella species of the world (Thysanoptera: Thripidae). Contributions on Entomology, International. 2, 355-389 (1997).
Réimpressions et autorisations
