Un protocole d’étude des événements induits par FcγRIIIa par des anticorps thérapeutiques dans des cellules tueuses naturelles humaines est décrit ici. Cette plate-forme de stimulation artificielle permet d’interroger les fonctions effectrices en aval telles que la dégranulation, la production de chimiokines / cytokines et les voies de signalisation médiées par les parties FcγRIIIa et Fc des anticorps impliqués dans la liaison.
Article de méthode
Évaluation des événements des cellules tueuses naturelles humaines provoquées par l’engagement de FcγRIIIa en présence d’anticorps thérapeutiques
Dans cet article
Résumé
Résumé
Un mécanisme d’action pour l’efficacité clinique des anticorps thérapeutiques est la promotion de fonctions liées au système immunitaire, telles que la sécrétion de cytokines et la cytotoxicité, entraînées par FcγRIIIa (CD16) exprimées sur des cellules tueuses naturelles (NK). Ces observations ont conduit à des recherches axées sur des méthodes permettant d’augmenter les événements médiés par les récepteurs Fc, notamment l’élimination d’une fraction fucose trouvée sur la partie Fc de l’anticorps. D’autres études ont élucidé les changements mécanistes dans la signalisation, les processus cellulaires et les caractéristiques cytotoxiques qui augmentent l’activité de l’ADCC avec les anticorps afucosylés. De plus, d’autres études ont montré les avantages potentiels de ces anticorps en combinaison avec des inhibiteurs de petites molécules. Ces expériences ont démontré les mécanismes moléculaires et cellulaires sous-jacents aux avantages de l’utilisation d’anticorps afucosylés dans des contextes combinés. Beaucoup de ces observations étaient basées sur un test d’activation in vitro artificiel dans lequel le FcγRIIIa sur des cellules NK humaines était activé par des anticorps thérapeutiques. Ce test a fourni la flexibilité nécessaire pour étudier les fonctions des cellules NK effectrices en aval, telles que la production de cytokines et la dégranulation. En outre, ce test a été utilisé pour interroger les voies de signalisation et identifier les molécules qui peuvent être modulées ou utilisées comme biomarqueurs. Enfin, d’autres molécules thérapeutiques (c’est-à-dire des inhibiteurs de petites molécules) ont été ajoutées au système pour fournir des informations sur la combinaison de ces thérapies avec des anticorps thérapeutiques, ce qui est essentiel dans l’espace clinique actuel. Ce manuscrit vise à fournir une base technique pour effectuer ce test artificiel d’activation des cellules NK humaines. Le protocole illustre les étapes clés de l’activation cellulaire ainsi que les applications potentielles en aval qui vont des lectures fonctionnelles aux observations plus mécanistes.
Introduction
Au cours des dernières décennies, l’accent a été mis sur le développement de thérapies ciblées contre le cancer à l’aide d’anticorps. Les anticorps thérapeutiques, tels que le trastuzumab et le rituximab, fonctionnent par de multiples mécanismes, notamment la prévention de la dimérisation des molécules de signalisation et la mobilisation du système immunitaire1,2. Cette dernière est réalisée par cytotoxicité cellulaire dépendante des anticorps (ADCC), dans laquelle des lymphocytes appelés cellules tueuses naturelles (NK) sont amenés à une cellule cible par l’anticorps1,2. En plaçant les cellules à proximité les unes des autres, la cellule NK est activée et peut lyser une tumeur/cellule cible par la sécrétion de molécules effectrices3.
Au niveau moléculaire, la partie Fab de l’anticorps lie son antigène apparenté exprimé sur les cellules tumorales, tandis que sa partie Fc engage le FcγRIIIa exprimé sur les cellules NK pour rapprocher les deux cellules1,2. Après l’engagement du FcγRIIIa, les voies de signalisation (c.-à-d. les voies MAPK et PI3K) entraînent le réarrangement du cytosquelette, la production de cytokines et la cytotoxicité4,5,6,7,8,9. Ainsi, l’ADCC est un événement piloté par FcγRIIIa médié par des cellules NK et des anticorps.
Parce que l’ADCC était considéré comme un mécanisme d’action pour ces anticorps thérapeutiques, les chercheurs ont cherché des méthodes pour augmenter l’ADCC en modifiant l’anticorps. Une modification a été l’élimination de la fucose sur la chaîne oligosaccharidique attachée à l’asparagine 297, ce qui augmente l’affinité de liaison de la partie Fc de l’anticorps à la FcγRIIIa10,11,12. Dans les études animales, les souris recevant des anticorps afucosylés ont présenté une croissance tumorale plus lente par rapport aux souris traitées avec son homologue fucosylé13. Plus important encore, l’obinutuzumab (p. ex., Gazyva, un anticorps afucosylé approuvé) a montré une meilleure efficacité par rapport au rituximab (p. ex., Rituxan, son homologue fucosylé) chez les patients diagnostiqués avec une leucémie lymphoïde chronique ou un lymphome folliculaire14,15.
Jusqu’à récemment, les mécanismes sous-jacents à l’augmentation de l’ADCC via les anticorps afucosylés étaient inconnus. Combiné au fait qu’il existe de nombreux programmes de recherche développant des anticorps thérapeutiques pour utiliser les mécanismes pilotés par FcγRIIIa pour cibler les cellules cancéreuses, il est impératif de développer des tests in vitro qui examinent les aspects moléculaires et cellulaires favorisés par ces anticorps. Cela fournit une compréhension fondamentale des mécanismes d’action ainsi que le potentiel de découverte de biomarqueurs. En tant que tel, un test d’activation artificielle a été développé pour étudier les fonctions médiées par FcγRIIIa dépendantes des anticorps en plus de la signalisation et des caractéristiques cellulaires8. Grâce à ces études, les mécanismes sous-jacents à une efficacité accrue des anticorps afucosylés ont été élucidés dans lesquels une affinité de liaison accrue augmente la signalisation pour promouvoir les propriétés cellulaires et les caractéristiques cytotoxiques8.
La tendance actuelle dans les essais cliniques est l’utilisation d’une combinaison de molécules thérapeutiques16. L’une des voies les plus fréquemment mutées est la voie PI3K, qui a suscité d’énormes efforts dans le développement d’inhibiteurs de petites molécules qui ciblent les composants de cette voie17,18,19,20. Pourtant, la façon dont ces molécules agissent en combinaison avec des anticorps thérapeutiques est relativement inconnue, en particulier dans les combinaisons où l’inhibiteur peut affecter les molécules qui nécessitent la voie PI3K pour fonctionner, telles que celles entraînées par des anticorps thérapeutiques.
À cette fin, le test in vitro utilisé pour les études sur les anticorps afucosylé a également été utilisé pour étudier la combinaison d’inhibiteurs de PI3K et d’anticorps thérapeutiques. Ces études ont défini les caractéristiques moléculaires de l’inhibition de PI3K sur les événements thérapeutiques pilotés par PI3K et ont décrit comment les anticorps afucosylés peuvent compenser cette perte de signalisation9. Ces résultats sont pertinents car ils donnent des orientations potentielles pour la conception d’essais cliniques. En outre, cette série d’expériences a également conduit aux premières observations décrites pour la régulation cinétique de la voie de signalisation PI3K pour moduler la transcription et la production de chimiokine / cytokine, qui peuvent servir de biomarqueurs potentiels9.
Le test d’activation in vitro artificiel utilisé pour définir la signalisation et les caractéristiques cellulaires décrites ci-dessus a été conçu pour étudier les événements induits par FcγRIIIa dans les cellules NK médiées par des anticorps en l’absence de cellules cibles. Sans cellules cibles dans le système, tous les événements et fonctions de signalisation observés peuvent être attribués directement aux cellules NK. Dans le test présenté, un anticorps est ajouté aux cellules NK purifiées, auquel cas la partie Fc se lie au FcγRIIIa. Ceci est suivi par la réticulation de l’anticorps à l’aide d’un anticorps anti-humain κ à chaîne légère pour stimuler artificiellement les cellules. La réticulation de l’anticorps imite la liaison de l’antigène cible pour générer une plate-forme de signalisation qui provoque des événements en aval. Selon la durée de la stimulation, les chercheurs peuvent évaluer la signalisation, les processus cellulaires, les caractéristiques cytotoxiques et les fonctions effectrices8,9. De même, ce test offre également une flexibilité dans l’étude de ces événements lorsque des anticorps sont combinés avec d’autres molécules9.
Ensemble, il s’agit d’un test in vitro idéal pour étudier les anticorps thérapeutiques qui suscitent des réponses des cellules NK par le biais de leur FcγRIIIa dans le cadre du mécanisme d’action. Ce protocole décrit la performance de ce test d’activation in vitro et donne un aperçu des différentes lectures qui peuvent être effectuées.
Protocole
Le protocole suivant est conforme aux lignes directrices du comité d’éthique de la recherche humaine d’iQ Bioscience.
1. Isolement des PBCC et enrichissement/purification des cellules NK
REMARQUE: D’autres méthodes d’isolement des cellules mononucléaires du sang périphérique (PBMA) et d’enrichissement / purification peuvent également être effectuées.
- Prélever 200 mL de sang dans des conditions régulées dans un tube contenant de l’héparine.
- Ajouter 15 mL du milieu de gradient de densité dans un tube de 50 mL avec une barrière poreuse incorporée. Faire tourner le tube à 1000 x g pendant 30 s.
- Ajouter 12,5 mL de sang dans le tube suivi d’un autre 12,5 mL de PBS, et inverser doucement 3x. Faire tourner le tube à 800 x g pendant 15 min à température ambiante (RT) sans pause.
- Préparez un tube conique de 50 mL avec 40 mL de PBS pour chaque tube avec une barrière poreuse pendant que les cellules tournent.
- Retirez soigneusement les tubes et inspectez après centrifugation. Vérifiez la recherche d’une fine couche visiblement blanche de PBCC au-dessus de la barrière poreuse, entre les démarcations de 20 mL et 25 mL sur le tube de 50 mL.
- Retirez soigneusement autant de liquide que possible du dessus à l’aide d’une pipette sans perturber la fine couche blanche de PBMC.
- Avec une pipette sérologique propre de 10 mL, retirez doucement la couche de PBMC en plus de la couche liquide claire et jaunâtre jusqu’au filtre du tube.
- Expulser les PBMC et le liquide dans le PBS conique de 50 mL préparé à l’étape 1.4. Tubes de rotation à RT et 300 x g pendant 5 min.
- Aspirez le lavage PBS et ajoutez 40 mL supplémentaires de PBS. Tubes de rotation à RT et 300 x g pendant 5 min.
- Après le lavage, comptez les cellules et ressuspendez-les dans 40 μL de 2% BSA/PBS pour 1 x 10⁷ cellules.
- Procéder à l’isolement des cellules NK en utilisant la méthode de choix. Les choix incluent le tri manuel ou automatisé à base de billesmagnétiques 9,21. Le tri cellulaire activé par fluorescence peut également être effectué22.
- Enlevez une petite aliquote de cellules pour déterminer la pureté des cellules NK par cytométrie en flux. La stratégie de contrôle comprend les éléments suivants : porte sur les cellules vivantes en fonction du profil de dispersion vers l’avant par rapport au profil de dispersion latérale, puis évaluer la pureté en fonction des marqueurs NK (p. ex., CD3, CD56) dans la population vivante spécifique. La pureté typique est de >95%.
- Une fois l’isolement terminé, filer les cellules à RT et 300 x g pendant 5 min pour granuler et aspirer.
- Resuspendez la pastille cellulaire à 1 x 10⁷ cellules/mL dans RPMI 1640 avec des nutriments, 10% de FBS inactivé par la chaleur, 1 mM de pyruvate de sodium, 55 mM de 2-ME et 10 mM de HEPES (pH = 7,2).
2. Activation médiée par les anticorps des cellules NK via FcγRIIIa
- Réglez une microcentrifugeuse réfrigérée à 4 °C.
- Distribuer 1 x 10⁶ (100 μL de) cellules NK remises enssais dans un ou plusieurs tubes de 1,5 mL et les placer sur de la glace.
REMARQUE: Les cellules peuvent être distribuées dans une plaque de fond en U de 96 puits s’il y a de nombreux échantillons. - Préparer 1 μL de 100 μg/mL de rituximab (ou anticorps d’intérêt) par échantillon et ajouter 1 μL aux cellules pour obtenir une concentration finale de 1 μg/mL d’anticorps.
REMARQUE: D’autres molécules peuvent être ajoutées aux cellules à ce stade ou plus tôt pour l’évaluation des effets combinés. Ici, le ritixumab a été utilisé pour la stimulation. Dans des études antérieures, de petites molécules inhibitrices ont été ajoutées aux stimulations9. - Incuber l’échantillon sur de la glace pendant 30 min. Pendant l’incubation, préparer 50 μL de 50 μg/mL d’anticorps anti-humains à chaîne légère κ par échantillon dans un milieu et chauffer à 37 °C sur un bloc thermique ou au bain-marie.
- Après incubation des cellules sur glace, ajouter 1 mL de milieu glacé et tourner à 135 x g pendant 5 min à 4 °C. Laver à nouveau avec 1 mL de milieu glacé.
- Aspirer le surnageant après le dernier lavage et ajouter 50 μL du mélange à chaîne légère anti-humain κ préparé à l’étape 2.5.
- Incuber immédiatement des échantillons pour les points temporels déterminés par l’utilisateur final à 37 °C sur un bloc chauffant ou au bain-marie.
- Arrêtez la stimulation en ajoutant 1 mL de milieu glacé et faites tourner immédiatement les échantillons dans une centrifugeuse réfrigérée à 135 x g pendant 5 min. Laver une fois de plus avec 1 mL de milieu glacé.
3. Applications et lectures en aval
- Interrogation de molécules de signalisation dans les cellules NK stimulées par FcγRIIIa par analyse par transfert de Western
REMARQUE: Différents appareils de séparation des protéines et de transfert membranaire peuvent être utilisés.- Après le dernier lavage avec des milieux glacés (étape 2.8), les cellules de lyse avec 20 μL de tampon RIPA contenant de la phosphatase et des inhibiteurs de la protéase se mélangent pendant 30 min sur de la glace.
- Tubes de rotation à 2100 x g pendant 15 min à 4 °C. Transférer le lysate dans un tube propre de 1,5 mL et ajouter les réactifs nécessaires à la séparation des protéines.
- Séparez les protéines sur le gel SDS-PAGE et transférez-les sur une membrane de nitrocellulose ou de PVDF selon des protocoles standard.
- Bloquer et sonder la membrane selon la fiche technique du fabricant pour l’anticorps de détection primaire (ici, pAKT, pPRAS 40 et pERK1/2 ont été utilisés).
- Ajouter un anticorps secondaire conjugué HRP et un réactif de chimiluminescence conformément aux recommandations du fabricant sur la membrane PVDF. Utilisez un film à rayons X ou un instrument de détection pour visualiser (ici, pAKT a été détecté à 60 kDa, pPRAS40 à 40 kDa et pERK1/2 à 42 kDa et 44 kDa).
- Isolement de l’ARNm et préparation pour l’analyse de l’expression génique des cellules NK stimulées par FcγRIIIa (Table des matériaux)
- Une fois le point de temps de stimulation atteint (étape 2.7), placez le tube sur de la glace et faites immédiatement tourner dans une centrifugeuse réfrigérée à 135 x g pendant 5 min (similaire à l’étape 2.8).
- Retirez le surnageant et lavez 2x avec 1 mL de PBS glacé.
- Cellules de lyse utilisant l’extraction de l’ARN d’isothiocyanate de guanidium (Table des matériaux). Utilisez 1 μg d’ARNm pour effectuer une transcription inverse à l’aide d’hexamères aléatoires avec un kit commercial (Table des matériaux).
REMARQUE: Toute méthode d’extraction d’ARN ou de synthèse d’ADNc peut être utilisée9,23,24. - Congeler l’ADNc à -20 °C jusqu’à l’analyse de l’expression génique.
- Évaluation du réarrangement cytosquelette dans les cellules NK stimulées par FcγRIIIa
- Après le dernier lavage avec un milieu glacé (étape 2.8), resuspendez la pastille cellulaire avec 50 μL de paraformaldéhyde à 3,7% pendant 10 min à TA.
- Ajouter 1 mL de PBS et tourner à 135 x g pendant 5 min à RT. Répétez ce lavage une fois de plus.
- Ajouter 100 μL de Triton X-100/PBS à 0,1 % pendant 5 min pour perméabiliser les cellules, et filer les cellules à 135 x g pendant 5 min à RT pour granuler.
- Ajouter 100 μL de phalloïdine de 5 unités/mL étiquetée AF488 diluée dans 1 % de BSA/PBS et incuber pendant 20 min à RT.
- Ajouter 1 mL de PBS et faire tourner à 135 x g pendant 5 min à RT pour laver. Resuspendez la pastille de cellule dans le volume souhaité pour l’analyse cytométrique en flux.
- Évaluation de la dégranulation des cellules NK stimulées par FcγRIIIa à l’aide de la coloration de surface CD107a
- Incuber les cellules avec l’anticorps d’intérêt sur la glace comme décrit aux étapes 2.1 à 2.4. Pendant l’incubation, préparer 50 μL de mélange d’anticorps par échantillon. Préparer le mélange dans un milieu cellulaire avec une concentration finale de 50 μg/mL d’anticorps anti-humains à chaîne légère κ et de 1 μg/mL marqué au fluorochrome CD107a.
- Après incubation des cellules sur la glace, ajouter 1 mL de milieu glacé. Tourner à 135 x g pendant 5 min à 4 °C, puis laver à nouveau avec 1 mL de glace froide.
- Aspirer le surnageant après le dernier lavage, puis ajouter 50 μL du mélange à chaîne légère anti-humain κ et incuber à 37 °C pour les points de temps souhaités.
- Aux points temporels souhaités, ajouter 1 mL de PBS et tourner à 135 x g pendant 5 min à RT. Aspirer le surnageant et ajouter 100 μL de paraformaldéhyde à 4 %. Incuber à RT pendant 10 min.
- Ajouter 1 mL de PBS et faire tourner à 135 x g pendant 5 min à RT pour laver. Resuspendez la pastille de cellule dans le volume souhaité pour l’analyse cytométrique en flux.
- Évaluation de la production de chimiokine/cytokine à partir de cellules NK stimulées par FcγRIIIa
REMARQUE: Différentes méthodes et / ou kits peuvent être utilisés pour l’évaluation de la production de chimiokine et de cytokines.- Une fois le point de temps de stimulation atteint (étape 2.7), placez immédiatement le tube sur de la glace et faites tourner dans une centrifugeuse réfrigérée à 135 x g pendant 5 min à 4 °C.
- Transférer le surnageant dans un récipient propre. Congeler le surnageant jusqu’à l’évaluation de la chimiokine ou de la cytokine à l’aide du test souhaité.
REMARQUE: Les granulés cellulaires peuvent maintenant être lavés avec du PBS glacé et traités pour la signalisation, l’expression génique et les études de réarrangement cytosquelette.
Résultats
Il est essentiel que la pureté des cellules NK soit élevée car la partie Fc des anticorps peut se lier au FcγRIIIa exprimé sur d’autres types de cellules, tels que les monocytes. Avec une grande pureté, les observations effectuées peuvent être attribuées directement aux événements pilotés par FcγRIIIa dans les cellules NK. Ici, les cellules NK avaient une pureté supérieure à 90% basée sur les taches CD56 et CD3 (Figure 1). De plus, la viabilité était de >95 %. Des précautions doivent être prises lors de l’utilisation d’isolements à faible viabilité. Pour s’assurer que les événements étaient entraînés par le FcγRIIIa, des transferts occidentaux pour phospho-AKT (pAKT), phospho-PRAS40 (pPRAS40) et phospho-ERK1/2 (pERK1/2) ont été effectués, dans lesquels les cellules NK ont été activées pendant 1 à 5 minutes. Comme on le voit, une accumulation de ces molécules a été observée (Figure 2). De même, les cellules NK activées ont exprimé MIP-1α, MIP-1β, IFN-γ et TNF-α, comme le montre l’analyse de l’expression génique (Figure 3).
De plus, un réarrangement du cytosquelette a été observé dans les cellules activées (Figure 4). Un pourcentage de cellules NK stimulées pendant 4 h a exprimé CD107a à la surface de la cellule (Figure 5). De plus, des γ IFN, TNF-α, MIP-1α, MIP-1β et RANTES ont été détectés dans le surnageant après 3 h de stimulation(Figure 6). Ces lectures sont attendues sur la base d’études publiées car les cellules NK activées auront ces protéines phosphorylées, ainsi que l’expression génique et la production des chimiokines et des cytokinesmentionnées 8,9. Dans toutes les expériences, les conditions de stimulation devraient inclure un contrôle de chaîne légère κ anti-humain uniquement et un anticorps sans contrôle de réticulation de la lumière κ anti-humaine. Ces cellules NK ne doivent pas présenter de signalisation phospho, de dégranulation, de production de chimiokine/cytokine ou d’expression génique de chimiokine/cytokine.
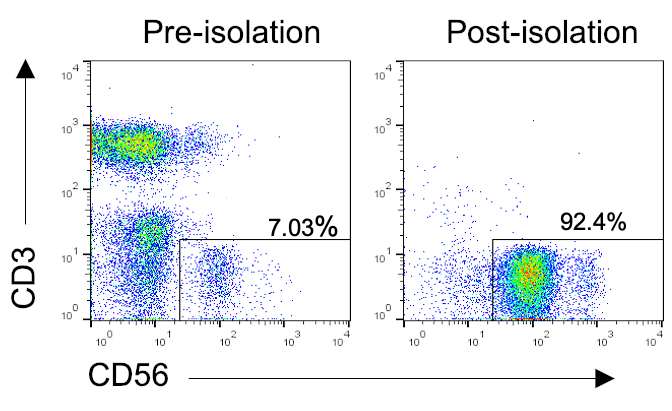
Figure 1 : Profils d’écoulement représentatifs de la pureté des cellules NK après isolement des PBMC. Les PBMA ont été isolés à partir du sang d’un donneur sain, suivis d’un enrichissement des cellules NK à l’aide d’une méthode de sélection négative pour l’isolement des cellules NK humaines (Table des matériaux). Les cellules ont été colorées avec CD56 et CD3 avant et après l’enrichissement pour déterminer la pureté. Diagrammes à points représentatifs de CD56 par rapport à CD3 avant et après l’isolement. Veuillez cliquer ici pour voir une version agrandie de cette figure.
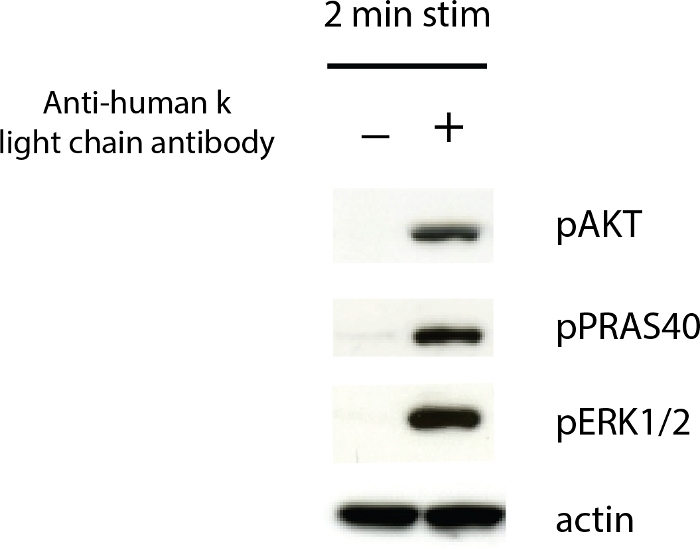
Figure 2 : Les cellules NK activées par FcγRIIIa présentent des molécules de signalisation phosphorylées. Les cellules ont été stimulées avec du rituximab pendant 2 minutes et des lysates cellulaires ont été fabriqués conformément au protocole. Les lysates ont été séparés sur un gel de 4% à 12%, suivi d’un transfert sur une membrane PVDF. La membrane a été sondée avec des anticorps contre pAKT, pPRAS40, pERK1/2 et actine. Veuillez cliquer ici pour voir une version agrandie de cette figure.
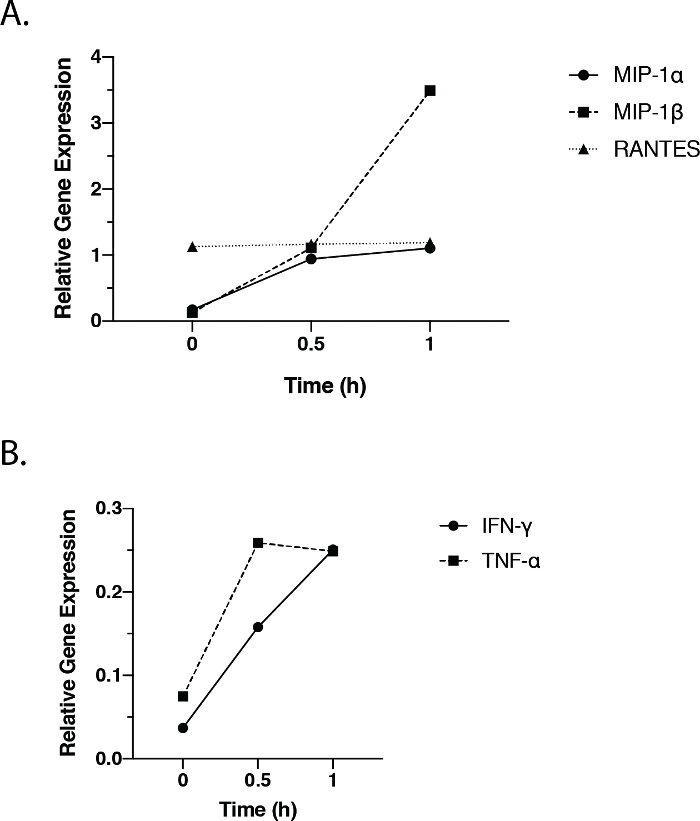
Figure 3 : Les cellules NK activées par FcγRIIIa expriment les gènes de la chimiokine et des cytokines. Les cellules NK ont été stimulées avec du rituximab pendant 0 h, 0,5 h et 1 h. L’ARNm a été collecté, transcrit à l’envers et soumis à une analyse qPCR pour MIP-1α, MIP-1β, RANTES, IFN-γ et TNF-α(Table des matériaux). (A) Expression relative de MIP-1α, MIP-1β et RANTES à chaque point temporel. (B) Expression relative de l’Γ de l’IFN et du α du TNF à chaque point temporel. Les valeurs ont été normalisées au gène de l’actine. Veuillez cliquer ici pour voir une version agrandie de cette figure.
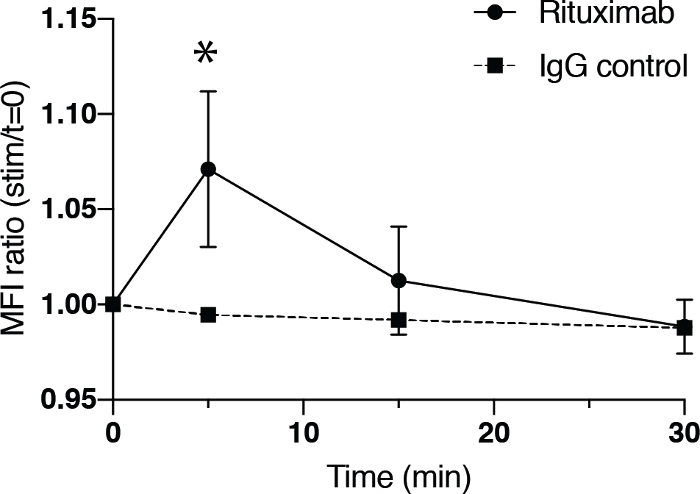
Figure 4 : Les cellules NK activées par FcγRIIIa présentent un réarrangement cytosquelette. Les cellules NK ont été stimulées avec du rituximab pendant 0 min, 5 min, 15 min et 30 min, suivies d’une évaluation du réarrangement du cytosquelette par coloration à la phalloïdine et cytométrie en flux. Rapport de l’IMF au point temporel expérimental à l’IFD au temps 0 des cellules NK stimulées par le rituximab (cercle, ligne continue) ou l’anticorps secondaire seul (carré, ligne pointillée). Les barres représentent le SD de quatre répétitions. Les astérisques représentent la signification statistique basée sur un test t de Student non appaire à deux queues (*p < 0,05). Veuillez cliquer ici pour voir une version agrandie de cette figure.
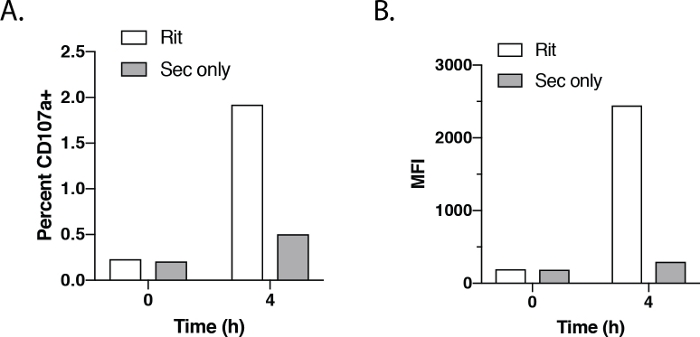
Figure 5 : Les cellules NK activées par FcγRIIIa expriment CD107a. Les cellules NK ont été stimulées avec du rituximab pendant 4 heures, suivies d’une évaluation de la dégranulation par CD107a et de la cytométrie en flux. (A) Pourcentage de cellules NK exprimant CD107a après stimulation par rituximab (barres blanches) ou anticorps anti-humains à chaîne légère κ (barres grises) pendant 0 h et 4 h. (B) CD107a MFI de cellules NK stimulées par le rituximab (barres blanches) ou anticorps anti-humains à chaîne légère κ (barres grises) après 0 h et 4 h de traitement. Veuillez cliquer ici pour voir une version agrandie de cette figure.
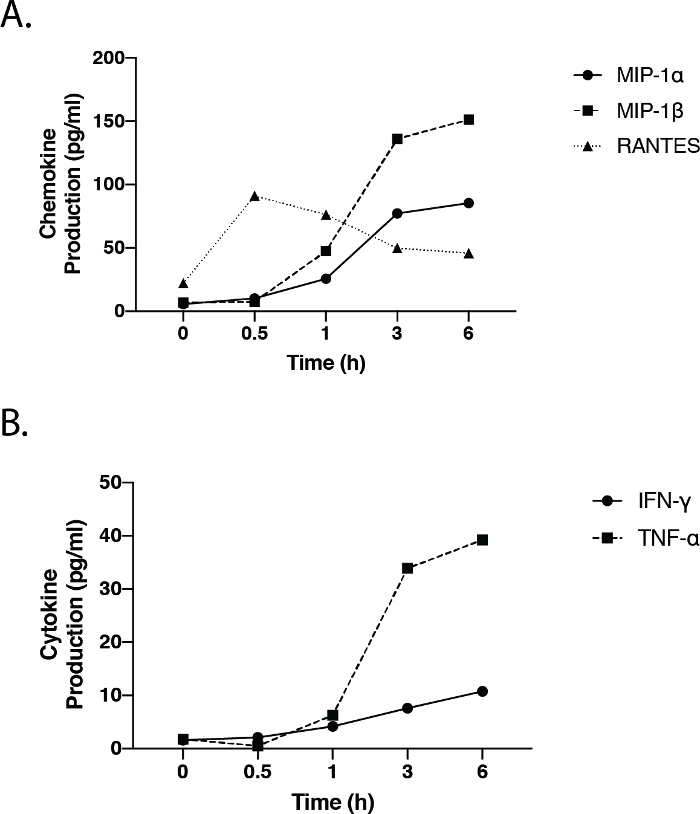
Figure 6 : Les cellules NK activées par FcγRIIIa sécrètent des chimiokines et des cytokines. Les cellules NK ont été stimulées pendant 0, 0,5, 1, 3 et 6 heures avec le rituximab. Le surnageant a été recueilli pour mesurer la libération de MIP-1α, MIP-1β, RANTES, IFN-γ et TNF-α par une méthode d’évaluation des cytokines à base de flux et de billes (Table des matériaux). (A) Production de MIP-1α, MIP-1β et RANTES à chaque point temporel. (B) L’IFN-γ et le TNF-α la production à chaque point temporel. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Discussion
Ce protocole décrit des méthodes pour étudier les événements induits par FcγRIIIa dans les cellules NK médiées par des anticorps. Ces techniques permettent d’évaluer les mécanismes d’action potentiels des anticorps thérapeutiques, qui est suggéré comme1,2. Plus précisément, ces méthodes offrent une flexibilité dans l’étude des voies de signalisation moléculaire sous-jacentes et des processus cellulaires responsables de l’ADCC. Ils permettent également d’observer d’autres fonctions effectrices, telles que la production de chimiokine et de cytokines. De plus, ces méthodes permettent d’identifier des biomarqueurs et des molécules potentiels qui peuvent être ciblés pour moduler l’ADCC.
La base de ce protocole est la stimulation artificielle des cellules NK à travers le FcγRIIIa avec des anticorps en l’absence de cellules cibles. Les cellules cibles liées aux anticorps servent généralement à favoriser la réticulation des récepteurs Fc pour former une plate-forme qui entraîne la signalisation et les effets en aval. Au lieu de cela, la réticulation est réalisée à l’aide d’un anticorps anti-humain à chaîne légère κ dans ce test, contournant le besoin de cellules cibles pour stimuler les cellules NK. Sans cellules cibles, les résultats et les observations peuvent être attribués directement aux cellules NK, en supposant que le processus de purification soit réussi.
Il est important de noter que l’utilisation d’anticorps anti-humains à chaîne légère κ pour réticuler l’anticorps n’interfère pas avec l’affinité de liaison de la partie Fc pour le FcγRIIIa, une interaction qui dicte la force de la réponse10,11,12,13. En effet, des études ont montré que les anticorps afucosylé augmentent l’ADCC en raison de leur affinité accrue pour le FcγRIIIa10,11,12,13. Des études ultérieures ont montré que cette affinité accrue n’est pas affectée par le substitut d’anticorps secondaires à chaîne légère κ anti-humain et peut être utilisée pour étudier la base d’une augmentation de l’ADCC8. Pour s’assurer que la cellule NK est stimulée par réticulation de l’anticorps, deux témoins négatifs doivent être inclus : 1) l’anticorps thérapeutique uniquement sans l’anticorps secondaire anti-humain κ à chaîne légère, et 2) l’anticorps secondaire anti-humain κ à chaîne légère seulement. Dans les deux cas, aucune fonction de signalisation ou d’effecteur ne doit être générée.
Cette méthode offre également une flexibilité pour étudier les effets des anticorps thérapeutiques sur les inhibiteurs de petites molécules. L’inhibiteur peut être ajouté avant la réticulation avec l’anticorps secondaire afin que l’inhibiteur ait le temps d’engager sa cible. Cependant, des études doivent être effectuées pour déterminer le moment optimal du prétraitement des inhibiteurs; ainsi, l’inhibiteur a un effet maximal sur la stimulation. Cela dit, les chercheurs peuvent également choisir d’étudier les effets d’un inhibiteur après la stimulation. Dans ce cas, l’inhibiteur peut être ajouté après la réticulation pour étudier comment il influence les signaux et les processus déjà générés. Ensemble, la méthode décrite ici offre une flexibilité maximale dans l’étude des effets combinatoires de différents inhibiteurs de petites molécules avec des anticorps thérapeutiques.
Comme mentionné ci-dessus, une variété de lectures peuvent être effectuées après la stimulation. Le transfert Western peut être effectué pour étudier la signalisation à l’aide de SDS-PAGE et de systèmes de transfert membranaire de divers fournisseurs. De même, l’expression des gènes peut également être évaluée à l’aide de diverses méthodes d’extraction de l’ARN, de réactifs de transcription inverse et d’instruments d’expression génique. Enfin, la coloration des protéines intracellulaires ou extracellulaires peut également être effectuée dans laquelle les échantillons peuvent être analysés à l’aide de différents cytomètres en flux. Pour la coloration intracellulaire des cytokines et cd107a (étape 3.4, qui peut être évaluée simultanément), la monensine et/ou la brefeldine A doivent être ajoutées pour maximiser les signaux. Nous avons utilisé différentes plates-formes pour chaque objectif expérimental et avons toujours observé des résultats similaires. Par conséquent, la méthode peut être complétée par divers réactifs, plates-formes et instruments, en fonction de l’étude.
Le temps de réticulation pour la stimulation dépendra de l’objectif de l’étude. Si des études de signalisation sont souhaitées, le temps de stimulation typique de la réticulation est compris entre 2 min et 10 min. pAKT, pPRAS40 et pERK1/2 accumulation culmine à 2 min et disparaît après 10 min8,9. Pour les études fonctionnelles (c’est-à-dire celles impliquant la production de chimiokine/cytokine), les cellules doivent être stimulées pendant au moins 30 min, selon l’analyte9. L’analyse de l’expression génique nécessite également généralement 30 min de stimulation9. Des précautions doivent être prises lors de l’utilisation de l’expression du gène RANTES comme lecture, car la production d’ARNm RANTES est indépendante de l’activation transcriptionnelle car elle est déjà stockée dans les cellules pour une traduction et une libération rapides des protéines lors de la stimulation25. La dégranulation, en revanche, nécessite au moins 3 h de stimulation. Malgré ces observations générales, les chercheurs devraient effectuer des études cinétiques pour déterminer le temps de stimulation optimal pour les molécules particulières d’intérêt.
De même, les chercheurs devraient titrer l’anticorps d’intérêt pour déterminer la concentration optimale car des anticorps de spécificités différentes se lient à FcγRIIIa avec des affinités différentes, même s’ils sont du même isotype. Par exemple, le rituximab et le trastuzumab sont tous deux un isotype IgG1 mais le trastuzumab se lie plus fortement au polymorphisme valiné de FcγRIIIa que le rituximab26,27. Cette différence d’affinité peut conduire à des différences fonctionnelles, telles que la dégranulation, comme observé dans des études publiées8.
La détermination de la concentration optimale est également importante en raison de la faible affinité de la partie Fc de l’anticorps pour le FcγRIIIa. Cela peut entraîner un lavage de l’anticorps puisque le protocole comprend des étapes de lavage après la liaison de l’anticorps au récepteur Fc. Cela peut alors conduire à un manque de sensibilité dans les tests comme le suggère le faible pourcentage de cellules CD107a positives après stimulation (Figure 5). Cependant, la détermination de la concentration optimale devrait donner l’assurance que les résultats ne sont pas dus à un manque de sensibilité. De plus, les cellules sont clairement activées dans les essais biochimiques et fonctionnels qui utilisent des cellules en vrac par opposition aux lectures de cellules uniques (Figure 2, Figure 3, Figure 6).
Le protocole est également limité car il n’imite pas entièrement ce qui se passe physiologiquement. L’anticorps K anti-humain secondaire utilisé est d’imiter la réticulation générée par l’antigène cible exprimé sur les cellules. Ici, une quantité saturante d’anticorps secondaires est ajoutée pour générer la réponse maximale. Cependant, des cellules cibles distinctes exprimeront différents niveaux d’antigène, ce qui affectera la réticulation et la réponse. Actuellement, cette plate-forme n’est pas optimisée pour imiter les effets de différents niveaux d’expression de l’antigène.
Un autre facteur à prendre en compte lors de la réalisation de ces expériences est la variabilité de donneur à donneur due à des antécédents génétiques et à des antécédents immunologiques différents entre les individus. Par conséquent, des précautions doivent être prises lors de la comparaison des réponses des cellules NK de différents donneurs dans les mêmes tests. De même, seules des conclusions générales doivent être tirées lorsque différents donneurs sont utilisés.
Dans l’ensemble, la méthode décrite est une plate-forme de stimulation simple et flexible pour étudier les événements médiés par FcγRIIIa induits par les anticorps dans les cellules NK. Il a été utilisé pour mieux comprendre la base de l’augmentation de l’ADCC et de l’efficacité observée avec les anticorps afucosylés8. Cette méthode a également été utilisée dans une étude combinant des anticorps thérapeutiques et des inhibiteurs de petites molécules PI3K9. De plus, un mécanisme jusqu’alors inconnu pour la production de chimiokine et de cytokines régulé par pS6 a été identifié9. Par conséquent, de futures études utilisant cette plate-forme de signalisation artificielle peuvent élucider davantage les mécanismes de régulation des fonctions effectrices pilotées par le FcγRIIIa. Il peut également potentiellement identifier de nouvelles molécules importantes pour ces mécanismes ainsi que de nouveaux rôles pour les molécules connues.
Déclarations de divulgation
Tous les auteurs sont ou ont été employés ou consultants pour iQ Biosciences.
Remerciements
Les auteurs remercient James Lee et Christopher Ng pour leurs commentaires et l’édition de ce manuscrit.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 16 % paraformaldéhyde | Thermo Fisher Scientific | 50-980-487 | |
| Alexa Fluor 488 phalloïdine | Thermo Fisher Scientific | A12379 | |
| anticorps anti-souris HRP | Cell Signaling Technologies | 7076 | |
| Instrument AutoMACS Méthode d’isolement des | Miltenyi | NK ; un autre instrument d’isolement peut être utilisé | |
| B-mercaptoéthanol | Thermo Fisher Scientific | 21985023 | |
| Albumine sérique bovine Fraction V, sans acides gras | Millipore Sigma | 10775835001 | |
| CD107a Anticorps APC | Biolegend | 328620 | |
| Cytokine 30-Plex Human Panel | Thermo Fisher Scientific | LHC6003M | méthode de chimiokine/cytokine ; une autre méthode d’analyse des chimiokines/cytokines peut être utilisée |
| FBS | Hyclone | SH30071.01 | |
| Anticorps à chaîne légère anti-humain &kappa ; de chèvre | Millipore Sigma | AP502 | |
| Inhibiteur de la protéase et de la phosphatase Halt Cocktail | Thermo Fisher Scientific | 78440 | |
| HEPES | Thermo Fisher Scientific | 15630080 | |
| Kit de transcription inverse de l’ADNc haute capacité | Thermo Fisher Scientific | 4368814 | méthode de transcription de l’ADNc ; utilisée selon le protocole du fabricant |
| Amorces IFN-° | Thermo Fisher Scientific | Hs00989291_m1 | |
| Tube Leukosep (50 ml conique avec barrière poreuse) | Greiner | 227290 | |
| Lymphoprep (milieu à gradient de densité) | Stemcell | 7851 | |
| MIP-1° amorces Thermo | Fisher Scientific | Hs00234142_m1 | |
| amorces MIP-1&beta ; Thermo | Fisher Scientific | Hs99999148_m1 | |
| Kit d’isolement de cellules NK | Miltenyi | 130-092-657 | Kit d’isolement de cellules NK ; un autre kit d’isolement peut être utilisé |
| NuPAGE 4-12 % Bis-Tris Protein Gels | Thermo Fisher Scientific | un autre système de séparation des protéines peut être utilisé | |
| Anticorps pAKT (S473) | Technologies de signalisation cellulaire | Anticorps 4060 | |
| pERK1/2 | Technologies de signalisation cellulaire | 4370 | |
| Anticorps pPRAS40 | Technologies de signalisation cellulaire | 13175 | |
| Membrane PVDF | Thermo Fisher Scientific | nitrocellulose peut être utilisée | |
| amorces RANTES | Thermo Fisher Scientific | Hs00982282_m1 | |
| tampon RIPA | Millipore Sigma | R0278 | |
| RPMI avec glutamax | Thermo Fisher Scientific | 61870 | |
| Pyruvate de sodium | Thermo Fisher Scientific | 11360070 | |
| TNF- ? amorces | Thermo Fisher Scientific | Hs00174128_m1 | |
| Triton X-100 | Thermo Fisher Scientific | 85111 | |
| TRIzol | Thermo Fisher Scientific | 15596018 | méthode d’isolement de l’ARN ; utilisé selon le protocole du fabricant |
| Module de transfert Xcell Blot II | Thermo Fisher Scientific | Un autre système de séparation des protéines peut être utilisé | |
| Système de chambre d’électrophorèse de gel de protéines Xcell SureLock | Thermo Fisher Scientific | Un autre système de séparation des protéines peut être utilisé | |
| &beta ;-actine HRP | anticorps Abcam | ab6721 | |
| &beta ;-actine amorces | Thermo Fisher Scientific | Hs00982282_m1 |
Références
- Hudis, C. A. Trastuzumab - Mechanism of Action and Use in Clinical Practice. New England Journal of Medicine. 357 (1), 39-51 (2007).
- Weiner, G. J. Rituximab: mechanism of action. Seminars inHhematology. 47 (2), 115-123 (2010).
- Orange, J. S. Formation and function of the lytic NK-cell immunological synapse. Nature Reviews Immunology. 8 (9), 713-725 (2008).
- Bonnema, J. D., Karnitz, L. M., Schoon, R. A., Abraham, R. T., Leibson, P. J. Fc receptor stimulation of phosphatidylinositol 3-kinase in natural killer cells is associated with protein kinase C-independent granule release and cell-mediated cytotoxicity. The Journal of Experimental Medicine. 180 (4), 1427-1435 (1994).
- Jiang, K., et al. Pivotal role of phosphoinositide-3 kinase in regulation of cytotoxicity in natural killer cells. Nature Immunology. 1 (5), 419-425 (2000).
- Kanakaraj, P., et al. Phosphatidylinositol-3 kinase activation induced upon Fc gamma RIIIA-ligand interaction. The Journal of Experimental Medicine. 179 (2), 551-558 (1994).
- Orange, J. S., Harris, K. E., Andzelm, M. M., Valter, M. M., Geha, R. S., Strominger, J. L. The mature activating natural killer cell immunologic synapse is formed in distinct stages. Proceedings of the National Academy of Sciences. 100 (24), 14151-14156 (2003).
- Liu, S. D., et al. Afucosylated Antibodies Increase Activation of FcγRIIIa-Dependent Signaling Components to Intensify Processes Promoting ADCC. Cancer Immunology Research. 3 (2), 173-183 (2015).
- Romeo, V., Gierke, S., Edgar, K. A., Liu, S. D. Effects of PI3K Inhibition on Afucosylated Antibody-Driven FcγRIIIa Events and Phospho-S6 Activity in NK Cells. The Journal of Immunology. 203 (1), 137-147 (2019).
- Mössner, E., et al. Increasing the efficacy of CD20 antibody therapy through the engineering of a new type II anti-CD20 antibody with enhanced direct and immune effector cell-mediated B-cell cytotoxicity. Blood. 115 (22), 4393-4402 (2010).
- Shields, R. L., et al. Lack of fucose on human IgG1 N-linked oligosaccharide improves binding to human Fcgamma RIII and antibody-dependent cellular toxicity. The Journal of Biological Chemistry. 277 (30), 26733-26740 (2002).
- Shinkawa, T., et al. The absence of fucose but not the presence of galactose or bisecting N-acetylglucosamine of human IgG1 complex-type oligosaccharides shows the critical role of enhancing antibody-dependent cellular cytotoxicity. The Journal of Biological Chemistry. 278 (5), 3466-3473 (2003).
- Junttila, T. T., et al. Superior In vivo Efficacy of Afucosylated Trastuzumab in the Treatment of HER2-Amplified Breast Cancer. Cancer Research. 70 (11), 4481-4489 (2010).
- Goede, V., et al. Obinutuzumab (GA101) plus chlorambucil (Clb) or rituximab (R) plus Clb versus Clb alone in patients with chronic lymphocytic leukemia (CLL) and preexisting medical conditions (comorbidities): Final stage 1 results of the CLL11 (BO21004) phase III trial. Journal of Clinical Oncology. 31, 15_suppl 7004(2013).
- Sehn, L. H., et al. Randomized Phase II Trial Comparing Obinutuzumab (GA101) With Rituximab in Patients with Relapsed CD20+ Indolent B-Cell Non-Hodgkin Lymphoma: Final Analysis of the GAUSS Study. Journal of Clinical Oncology. 33 (30), 3467-3474 (2015).
- Pons-Tostivint, E., Thibault, B., Guillermet-Guibert, J. Targeting PI3K Signaling in Combination Cancer Therapy. Trends in Cancer. 3 (6), 454-469 (2017).
- Engelman, J. A. Targeting PI3K signalling in cancer: opportunities, challenges and limitations. Nature Reviews. Cancer. 9 (8), 550-562 (2009).
- Fruman, D. A., Rommel, C. PI3K and cancer: lessons, challenges and opportunities. Nature Reviews. Drug Discovery. 13 (2), 140-156 (2014).
- Janku, F., Yap, T. A., Meric-Bernstam, F. Targeting the PI3K pathway in cancer: are we making headway. Nature Reviews. Clinical Oncology. 15 (5), 273-291 (2018).
- Samuels, Y., et al. High frequency of mutations of the PIK3CA gene in human cancers. Science. 304 (5670), New York, N.Y. 554(2004).
- Kanevskiy, L. M., Telford, W. G., Sapozhnikov, A. M., Kovalenko, E. I. Lipopolysaccharide induces IFN-γ production in human NK cells. Frontiers in Immunology. 4, (2013).
- Romagnani, C., et al. Activation of human NK cells by plasmacytoid dendritic cells and its modulation by CD4+ T helper cells and CD4+ CD25hi T regulatory cells. European Journal of Immunology. 35 (8), 2452-2458 (2005).
- Sivori, S., et al. CpG and double-stranded RNA trigger human NK cells by Toll-like receptors: Induction of cytokine release and cytotoxicity against tumors and dendritic cells. Proceedings of the National Academy of Sciences. 101 (27), 10116-10121 (2004).
- Hanna, J., et al. Novel Insights on Human NK Cells' Immunological Modalities Revealed by Gene Expression Profiling. The Journal of Immunology. 173 (11), 6547-6563 (2004).
- Swanson, B. J., Murakami, M., Mitchell, T. C., Kappler, J., Marrack, P. RANTES production by memory phenotype T cells is controlled by a posttranscriptional, TCR-dependent process. Immunity. 17 (5), 605-615 (2002).
- Jo, M., Kwon, H. S., Lee, K. H., Lee, J. C., Jung, S. T. Engineered aglycosylated full-length IgG Fc variants exhibiting improved FcγRIIIa binding and tumor cell clearance. mAbs. 10 (2), 278-289 (2018).
- Isoda, Y., et al. Importance of the Side Chain at Position 296 of Antibody Fc in Interactions with FcγRIIIa and Other Fcγ Receptors. PLoS ONE. 10 (10), 0140120(2015).
Réimpressions et autorisations
