Cet article décrit comment effectuer une méthode chirurgicale pour inhiber la formation de l’épiderme de la plaie pendant la régénération des membres axolotl en suturant immédiatement une peau de pleine épaisseur sur le plan d’amputation. Cette méthode permet aux chercheurs d’étudier les rôles fonctionnels de l’épiderme de la plaie au cours des premiers stades de la régénération des membres.
Article de méthode
Inhibition de la formation de l’épiderme de la plaie par chirurgie complète du lambeau de peau pendant la régénération des membres axolotl
Dans cet article
Résumé
Résumé
Les expériences classiques en biologie régénérative de la salamandre au cours du siècle dernier ont établi depuis longtemps que l’épiderme de la plaie est une structure de signalisation cruciale qui se forme rapidement après l’amputation et est nécessaire à la régénération des membres. Cependant, les méthodes permettant d’étudier sa fonction précise au niveau moléculaire au cours des dernières décennies ont été limitées en raison d’un manque de techniques fonctionnelles précises et d’informations génomiques disponibles dans les systèmes modèles de salamandres. Fait intéressant, la pléthore récente de technologies de séquençage associée à la libération de divers génomes de salamandres et à l’avènement de méthodes de tests génétiques fonctionnels, y compris CRISPR, permet de revisiter ces expériences fondamentales à une résolution moléculaire sans précédent. Ici, je décris comment effectuer la chirurgie du lambeau de peau complet (FSF) classiquement développée chez les axolotls adultes afin d’inhiber la formation de l’épiderme de la plaie immédiatement après l’amputation. L’épiderme de la plaie se forme normalement par migration distale des cellules épithéliales dans le proximal de la peau vers le plan d’amputation pour sceller la plaie de l’environnement extérieur. La chirurgie consiste à suturer immédiatement une peau de pleine épaisseur (qui comprend à la fois des couches épidermiques et dermiques) sur le plan d’amputation pour entraver la migration des cellules épithéliales et le contact avec les tissus mésenchymateux endommagés sous-jacents. Les chirurgies réussies entraînent l’inhibition de la formation de blastème et la régénération des membres. En combinant cette méthode chirurgicale avec des analyses moléculaires et fonctionnelles contemporaines en aval, les chercheurs peuvent commencer à découvrir les fondements moléculaires de la fonction et de la biologie de l’épiderme des plaies pendant la régénération des membres.
Introduction
Depuis que Lazzaro Spallanzani l’a signalé en 17681, la régénération des membres de la salamandre a été l’un des phénomènes de régénération naturelle les plus étudiés qui a épris les biologistes pendant des siècles. La régénération réussie des membres dépend de la formation, de l’excroissance et de la formation ultérieure d’une structure cellulaire indifférenciée connue sous le nom de blastème. Les chercheurs ont fait des progrès significatifs dans la compréhension de la composition cellulaire du blastème ainsi que des tissus de soutien et des types de cellules nécessaires à sa formation2,3,4,5,6,7,8,9,10,11,12,13 . Pourtant, les mécanismes de signalisation coordonnés entre différents tissus et types de cellules qui conduisent à l’initiation de la formation de blastèmes restent mal compris.
Une exigence clé pour une formation et une régénération réussies du blastème est l’épiderme de la plaie, un épithélium transitoire et spécialisé qui recouvre le plan d’amputation dans les 12 heures suivant l’amputation10. Après l’amputation, les cellules épithéliales du proximal de la peau intacte à la blessure migrent rapidement sur le plan d’amputation pour former un épithélium mince14. Au fur et à mesure que le blastème se forme dans les semaines suivantes, l’épiderme précoce de la plaie se développe en une structure de signalisation épithéliale plus épaisse appelée calotte épithéliale apicale (AEC)15. Alors que la peau normale de pleine épaisseur contient à la fois une couche épithéliale et dermique séparée par une lame basale, l’épiderme de la plaie / AEC se compose uniquement d’une couche épithéliale et manque d’une lame basale16,17. L’absence de la lame basale et du derme permet un contact direct entre les cellules épithéliales de la plaie et les tissus sous-jacents, ce qui facilite la signalisation bidirectionnelle entre les deux compartiments, ce qui est essentiel à la formation et à l’entretien du blastème17,18.
Des études expérimentales classiques ont mis au point diverses méthodes chirurgicales innovantes pour sonder la fonction et la nécessité de l’épiderme de la plaie / AEC en inhibant sa formation. Ces méthodes comprenaient la suture19 ou la greffe d’une peau de pleine épaisseur20,21 sur le plan d’amputation, la suture immédiate du membre amputé dans la cavité corporelle22 et l’ablation quotidienne continue ou l’irradiation de l’épiderme précoce de la plaie et de l’AEC23,24. Dans l’ensemble, ces expériences ont non seulement établi l’importance de l’épiderme de la plaie / AEC, mais ont également déterminé davantage ses rôles dans l’histolyse tissulaire précoce ainsi que le maintien de la prolifération des cellules progénitrices et de l’excroissance blastémique13 tout au long de la régénération.
Cependant, ces études antérieures se limitaient en grande partie à la coloration histologique ainsi qu’aux impulsions de thymidine tritiées pour suivre la prolifération cellulaire. En fait, la revisite de ces expériences classiques avec des technologies de séquençage modernes et des techniques fonctionnelles chez les salamandres n’a été faite que récemment et a conduit à la découverte de rôles supplémentaires pour l’épiderme de la plaie dans la modulation de l’inflammation et de la dégradation / dépôt ECM au cours des premiers stades de la régénération25. Avec la libération de diverses séquences de génome et de transcriptome de salamandre26,27,28,29,30,31,32,33,34, ainsi que le nombre croissant de méthodes fonctionnelles disponibles chez les espèces de salamandres11,35,36,37,38 , les chercheurs sont maintenant bien placés pour commencer à démêler les mécanismes moléculaires à l’origine de la formation, de la fonction et du développement de l’épiderme de la plaie.
Malheureusement, plusieurs de ces méthodes classiques utilisées pour inhiber la formation de l’épiderme des plaies sont techniquement difficiles, présentant des difficultés de reproductibilité entre les répliques biologiques dans la même expérience. Par exemple, le maintien des greffes de peau peut être difficile car les greffons peuvent éventuellement tomber du membre hôte et l’ablation quotidienne de l’épiderme de la plaie / AEC est difficile sans endommager les tissus sous-jacents. De plus, la suture du membre amputé dans la cavité corporelle est difficile et nécessite également des blessures supplémentaires sur le site d’insertion. D’autre part, la suture immédiate de la peau de pleine épaisseur sur le plan d’amputation est relativement simple, techniquement reproductible et introduit un minimum de lésions tissulaires. Cette méthode chirurgicale de lambeau de peau complet (FSF) a déjà été développée par Anthony Mescher en 1976 chez des tritons adultes (Notophthalmus viridiscens). Il a démontré que la chirurgie FSF inhibait la formation et la fonction de l’épiderme de la plaie en interdisant à la fois la migration des cellules épithéliales sur le plan d’amputation et le contact direct entre les cellules épithéliales et les tissus sous-jacents.
Ici, cette intervention chirurgicale est montrée étape par étape en utilisant le membre axolotl. Associée aux technologies moléculaires et de séquençage modernes, cette technique peut s’avérer très utile pour les chercheurs afin d’approfondir notre compréhension de la formation et de la fonction de l’épiderme des plaies / AEC pendant la régénération des membres.
Protocole
Toutes les expériences sur les animaux ont été effectuées conformément aux directives de l’IACUC (Protocole #: 11-32) et de l’AAALAC à l’Université Harvard.
1. Préparation des solutions et configuration pour l’anesthésie et la récupération
- Préparer une solution fraîche de tricaïne à 0,1% pour l’anesthésie et une solution de sel de sodium de sulfamérazine à 0,5% pour la récupération. Fabriquer les solutions en utilisant de l’eau adaptées à l’élevage d’axolotl37 selon les protocoles approuvés par l’IACUC dans l’établissement de recherche concerné (solution modifiée de Holtfreter, par exemple). Assurez-vous que les solutions sont bien mélangées et que suffisamment de volume est préparé afin d’immerger tout l’axolotl.
- Pour préparer une solution de tricaïne à 0,1%, mélanger 1 g de tricaïne et 1 g de bicarbonate de sodium avec 1 L d’eau. La solution peut être mise à l’échelle selon cette recette.
- Pour préparer une solution de sel de sodium à 0,5%, mélanger 5 g de sel de sulfamérazine sodique avec 1 L d’eau. La solution peut être mise à l’échelle selon cette recette. La solution de sulfamérazine est un antibiotique qui préviendra l’infection bactérienne pendant la récupération chirurgicale.
- Désinfectez la zone chirurgicale en la pulvérisant avec du Clidox-S ou de l’éthanol à 70%. Stériliser les outils chirurgicaux (pinces, ciseaux à dissection, ciseaux à ressort) par autoclavage. Si vous effectuez plusieurs chirurgies, assurez-vous de stériliser les outils chirurgicaux avec un stérilisateur de perles chaudes entre les animaux.
- Pour installer la zone de récupération, placez une boîte de Petri de 15 cm ou tout récipient qui s’adaptera à l’axolotl sur un seau rempli de glace humide. Remplissez la boîte de Petri avec une faible teneur en solution de sel de sodium de sulfamérazine à 0,5%, suffisamment pour que l’axolotl ne soit pas complètement immergé. La récupération sur la glace après la chirurgie ralentira les mouvements de l’animal pendant qu’il se réveille de l’anesthésie, permettant à la zone suturée de guérir relativement sans être perturbée.
REMARQUE: Cette configuration peut être personnalisée par les chercheurs en fonction des matériaux dont ils disposent.
2. Effectuer l’intervention chirurgicale complète du lambeau de peau
- Anesthésier l’axolotl en l’immergeant dans un récipient de solution de tricaïne à 0,1%. Cela prendra environ 15 à 20 minutes. Assurez-vous que l’axolotl est bien entièrement anesthésié en effectuant un pincement de la queue. S’il n’y a pas de réponse de l’axolotl, procédez à la chirurgie.
REMARQUE: Utilisez des axolotls plus anciens et plus grands pour cette chirurgie (au moins 15 cm). Assurez-vous que l’axolotl reste bien hydraté tout au long de la chirurgie en mouillant la peau périodiquement avec de l’eau du système axolotl à l’aide d’une pipette en plastique. Assurez-vous de préparer le site chirurgical de manière aseptique en irriguant la zone avec du PBS stérile avant la chirurgie. L’animal doit également être placé sur un drap chirurgical stérile pour la procédure. - Effectuer une amputation d’un membre à l’extrémité distale des éléments squelettiques zéugopodiens à l’aide des ciseaux disséquants (Figure 1.1).
- À l’aide des ciseaux à ressort, faites une petite incision (environ 2 mm) sur la partie ventrale de la peau (Figure 1.2).
- À l’aide de la pince, pelez soigneusement la peau jusqu’à environ la ligne médiane des éléments squelettiques zégopodiens, exposant ainsi les tissus des membres sous-jacents (muscle, os, etc.). (Figure 1.3). Assurez-vous de ne pas endommager la peau. Voir la note après l’étape 2.8.
- Amputer les tissus des membres sous-jacents exposés à la ligne médiane du zéugopode à l’aide de ciseaux chirurgicaux (Figure 1.4).
- Repoussez le tissu musculaire avec les ciseaux chirurgicaux et coupez l’os exposé.
REMARQUE: Ceci est nécessaire pour assurer une meilleure guérison et aussi pour augmenter le succès de la chirurgie car l’os saillant peut être déchiqueté contre le lambeau suturé et perturber l’intégrité d’un lambeau de peau intact plus tard. - À l’aide de la pince, tirez soigneusement la peau de toute épaisseur supplémentaire sur le plan d’amputation pour couvrir les tissus sous-jacents exposés et la suture en place en la connectant à la peau ventrale de pleine épaisseur (Figure 1.5).
- Suturez les côtés droit et gauche restants du lambeau de peau dans les parties ventrales sous-jacentes de la peau intacte. Cela peut être fait soit en suturant les côtés du rabat d’une manière « entrecroisée » (recommandé) (Figure 1.6-1.9), soit simplement en suturant directement dans la peau ventrale. Utilisez les pinces et les ciseaux à ressort incurvés pour la suture. Assurez-vous qu’aucun tissu sous-jacent exposé ne peut être vu et que les sutures sont attachées serrées (nouées au moins trois fois).
REMARQUE: Il est essentiel que la peau intacte ne soit pas endommagée aux étapes 2.4, 2.7-2.8. Nous avons constaté que les dommages à la peau de toute l’épaisseur ont été corrélés avec des chirurgies infructueuses, car les zones de dommages peuvent encore former un petit épiderme de plaie. Si possible, essayez d’utiliser une paire de pinces plus terne lorsque vous tendez le lambeau de peau de toute l’épaisseur. - Effectuer une amputation sur le membre controlatéral (contrôle interne facultatif de l’animal) en l’amputant au niveau du zégopode moyen avec des ciseaux chirurgicaux. Repoussez le tissu musculaire avec des ciseaux chirurgicaux et coupez l’os exposé.
REMARQUE: Un contrôle interne des membres controlatérals peut être effectué pour mieux évaluer le succès de la chirurgie à l’étape 4 chez le même animal. Cependant, l’amputation du même membre chez un animal séparé peut également être utilisée pour servir de contrôle.
3. Rétablissement et soins postopératoires
- Une fois la chirurgie terminée, placez un Kimwipe ou une serviette en papier stérile au fond du récipient ou de la boîte de Pétri pour le mouiller. Placez l’animal dans le récipient sur de la glace humide et enroulez doucement les extrémités exposées du Kimwipe ou de l’essuie-tout autour du dessus de l’animal pour le garder bien hydraté avec une solution de sulfamérazine. Laisser sur de la glace humide pendant 30 minutes à 1 heure pour assurer un mouvement minimal pendant la récupération de l’anesthésie.
- Placer l’animal dans un récipient à boîtier statique avec une solution de sulfamérazine à 0,5%. Les axolotls doivent rester dans cette solution pendant les premières 24 heures afin de prévenir l’infection.
- Placez l’axolotl dans l’eau normale du système et surveillez la santé quotidiennement. Assurez-vous qu’aucune suture ne tombe chaque jour, car cela peut entraîner la formation d’un petit épiderme de plaie qui confondra les résultats.
REMARQUE: Assurez-vous que le récipient du boîtier dispose de suffisamment d’espace pour que l’axolotl puisse se déplacer et minimisez les risques que le membre suturé sur l’axolotl puisse entrer en contact avec les côtés du récipient. Cela aidera à s’assurer que les sutures restent en place, en particulier pendant la première semaine après la chirurgie.
4. Évaluation du succès de la chirurgie au stéréomicroscope
REMARQUE: Nous recommandons de vérifier les animaux au stéréomicroscope au moins une fois par semaine pour évaluer l’intégrité du lambeau de peau complet et le succès de la chirurgie.
- Anesthésier l’axolotl dans 0,1% de tricaïne comme à l’étape 2.1. Assurez-vous qu’il y a suffisamment d’espace dans le récipient pour que l’axolotl puisse se déplacer.
- Si vous inspectez pendant les deux premières semaines après la chirurgie, inspectez le membre suturé à l’aide d’un stéréomicroscope pour vous assurer qu’aucune suture n’est sortie et qu’un épiderme mince et clair n’est visible nulle part. Si vous inspectez la troisième semaine après la chirurgie ou plus tard, assurez-vous qu’un blastème ne s’est pas formé et comparez avec la façon dont le membre amputé de contrôle normal (du même animal ou d’un animal différent) a progressé pendant la régénération (c.-à-d. si un blastème s’est formé).
- Lorsque cela est fait, remettre l’axolotl à l’eau du système normal et aux conditions d’élevage.
Résultats
Ce protocole chirurgical permettra l’inhibition complète de la formation de l’épiderme de la plaie (Figure 1) et, finalement, la régénération des membres. Une chirurgie réussie entraîne l’absence de formation de blastème en environ 2-3 semaines en fonction de la taille de l’animal, tandis que les membres régénérants de contrôle devraient former un blastème normalement.
Les chercheurs devraient inspecter le membre suturé à l’œil nu tous les 2-3 jours pour s’assurer que les sutures ne sont pas sorties et qu’un blastème ne se forme pas. Si une ou plusieurs des sutures sortent, un épiderme de plaie peut encore se former, entraînant un blastème petit ou grand et une chirurgie infructueuse (Figure 2). De plus, les chercheurs devraient inspecter le membre suturé au moins une fois par semaine sous un stéréomicroscope pour s’assurer qu’un épiderme mince de la plaie n’est pas évident nulle part sur la surface de l’amputation. À titre de comparaison, les chercheurs devraient également examiner le membre régénérant témoin qui devrait avoir un épiderme enroulé sur le plan d’amputation et former un blastème sur 2-3 semaines. L’épiderme de la plaie apparaîtra mince et clair, tandis que la peau normale apparaîtra plus opaque et rose pâle (presque blanc), jaune clair ou vert foncé chez les axolotls leucistiques, albinos ou de type sauvage, respectivement.
Si les chercheurs souhaitent prélever du tissu avant les étapes de formation du blastème à 2-3 semaines, ils doivent inspecter les membres suturés avant le prélèvement de l’échantillon pour s’assurer que les sutures sont restées en place et qu’un petit épiderme de plaie ne s’est pas formé. De plus, la section sagitale à travers le tissu du membre suturé et l’exécution d’analyses histologiques à tout moment peuvent également vérifier la présence du derme du lambeau de peau complet entourant tout le plan d’amputation et l’absence d’épiderme de la plaie (Figure 3).

Figure 1 : Schéma des étapes de la chirurgie complète du lambeau de peau.
Les étapes du protocole sont numérotées et schématisées ici. Les lignes pointillées indiquent les plans d’amputation aux étapes 1 et 3 du protocole. Veuillez cliquer ici pour voir une version agrandie de cette figure.
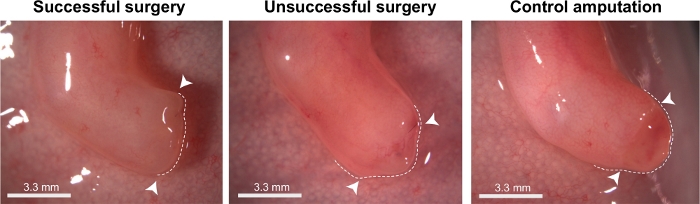
Figure 2 : Exemples de chirurgies réussies et infructueuses de lambeaux de peau complets.
Image représentative en champ lumineux d’un membre qui a subi une chirurgie réussie (à gauche), une chirurgie infructueuse (à droite) et un membre régénérant de contrôle (pas de chirurgie) 25 jours après l’amputation (dpa). La chirurgie réussie a un plan d’amputation plat où le lambeau de peau complet a été suturé, tandis que la chirurgie infructueuse a un petit blastème en développement. Les pointes de flèche désignent le plan d’amputation et les lignes pointillées blanches sont là pour aider à visualiser l’absence de blastème dans la chirurgie réussie et la présence de blastèmes dans la chirurgie infructueuse et contrôler les membres en régénération. Veuillez cliquer ici pour voir une version agrandie de cette figure.

Figure 3 : Coloration histologique des membres normaux en régénération et suturés FSF.
(A-B') Images représentatives en champ clair de sections colorées picro-mallory provenant de membres axolotl régénérés (A-A') et suturés (B-B') à 7 dpa. Les encarts A et B sont représentés respectivement en A' et B'. La couche dermique lourde en collagène tapisse et recouvre tout le plan d’amputation dans les membres suturés. Le plan d’amputation est désigné par des pointes de flèche en A-B. Les barres d’échelle représentent 500 μm. Ce chiffre a été adapté de Tsai et al.25. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Discussion
Cet article décrit un protocole pour effectuer des chirurgies complètes du lambeau de peau dans les membres axolotls pour inhiber la formation de l’épiderme de la plaie. Bien que cette chirurgie soit relativement simple et techniquement reproductible par rapport à d’autres méthodes d’inhibition de la formation de l’épiderme de la plaie, plusieurs étapes critiques peuvent avoir un impact sur le succès de la chirurgie. Tout d’abord, lorsque vous tirez le lambeau de peau intact sur les tissus sous-jacents exposés, il est primordial que la peau de toute l’épaisseur ne soit en aucun cas endommagée. Les dommages au lambeau de peau peuvent encore conduire à la formation d’un petit épiderme de plaie, ce qui peut entraîner une petite excroissance semblable à un blastème. Deuxièmement, assurez-vous que les sutures ne tombent pas pendant les soins postopératoires, car cela peut également entraîner la formation d’un petit épiderme de plaie. À ce stade, il est important de minimiser le contact potentiel entre le membre suturé et toute surface, en particulier pendant la première semaine après la chirurgie. Plusieurs façons de prévenir cela impliquent de loger et d’anesthésier l’axolotl dans un récipient suffisamment grand pour que l’axolotl ait beaucoup d’espace pour se déplacer après la chirurgie.
Cette chirurgie a également plusieurs limites. Le plus notable est peut-être que le succès des chirurgies ne peut être évalué que de deux manières: en utilisant la lunette de dissection pendant les deux premières semaines de la chirurgie pour rechercher une absence d’épiderme de plaie et / ou en vérifiant si un blastème se forme dans les 3 semaines. Bien que ces méthodes soient efficaces, elles ont un débit relativement faible. Le développement de futurs axolotls rapporteurs transgéniques pour les marqueurs spécifiques de l’épiderme des plaies pourrait aider à accélérer le dépistage des chirurgies réussies par rapport aux chirurgies infructueuses. De plus, cette chirurgie est plus difficile à effectuer sur des animaux plus jeunes car la peau intacte est plus fragile. L’utilisation d’axolotls sub-adultes ou adultes est donc recommandée.
Bien que cette chirurgie ait été développée à l’origine chez N. viridiscens19, elle a été facilement adaptée aux axolotls25,39 et peut probablement être appliquée à d’autres espèces de salamandres. En résumé, l’application de cette technique à de futures études sur la régénération des membres permettra aux chercheurs de développer davantage d’outils pour aborder la biologie de l’épiderme des plaies et d’identifier les mécanismes sous-jacents qui déterminent sa fonction dans l’initiation de la formation de blastème.
Déclarations de divulgation
Les auteurs n’ont rien à divulguer.
Remerciements
L’auteur remercie Doug pour ses encouragements constants et son soutien indéfectible, ainsi que les membres du laboratoire Melton pour leurs commentaires utiles sur le manuscrit. L’auteur tient également à remercier le Harvard Office of Animal Resources (OAR) pour ses soins dévoués aux animaux.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Ciseaux à ressort incurvés | Fine Scientific Tools | 15009-08 | |
| Ethyl 3-aminobenzoate methanesulfonate (Tricaine) | Sigma-Aldrich | 886-86-2 | |
| Pince | Fine Scientific Tools | 11252-40 | Besoin de deux paires |
| de sutures en nylon monofilament (9-0) | Roboz | SUT-1000-21 | |
| Bicarbonate | de sodium Sigma-Aldrich | S5761 | |
| Stéréomicroscope | Leica | MZ6 | |
| Sel de sodium de sulfamérazine | Sigma-Aldrich | 127-58-2 | |
| Ciseaux chirurgicaux | Outils scientifiques fins | 14002-14 |
Références
- Spallanzani, L. Prodromo Di Un'opera Da Imprimersi Sopra Le Riproduzioni Animali. , Nella Stamperia di Giovanni Montanari (1768).
- Gerber, T., et al. Single-cell analysis uncovers convergence of cell identities during axolotl limb regeneration. Science. , (2018).
- Leigh, N. D., et al. Transcriptomic landscape of the blastema niche in regenerating adult axolotl limbs at single-cell resolution. Nature Communications. 9 (1), 5153(2018).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- McCusker, C., Bryant, S. V., Gardiner, D. M. The axolotl limb blastema: cellular and molecular mechanisms driving blastema formation and limb regeneration in tetrapods. Regeneration (Oxford). 2 (2), 54-71 (2015).
- Endo, T., Bryant, S. V., Gardiner, D. M. A stepwise model system for limb regeneration. Developmental Biology. 270 (1), 135-145 (2004).
- Tsai, S. L. The molecular interplay between progenitors and immune cells in tissue regeneration and homeostasis. Journal of Immunology and Regenerative Medicine. 7, 100024(2020).
- Godwin, J. W., Pinto, A. R., Rosenthal, N. A. Macrophages are required for adult salamander limb regeneration. Proceedings of the National Academy of Sciences of the United States of America. 110 (23), 9415-9420 (2013).
- Tanaka, E. M. The molecular and cellular choreography of appendage regeneration. Cell. 165 (7), 1598-1608 (2016).
- Campbell, L. J., Crews, C. M. Wound epidermis formation and function in urodele amphibian limb regeneration. Cellular and Molecular Life Sciences. 65 (1), 73-79 (2008).
- Fei, J. F., et al. Efficient gene knockin in axolotl and its use to test the role of satellite cells in limb regeneration. Proceedings of the National Academy of Sciences of the United States of America. 114 (47), 12501-12506 (2017).
- Sandoval-Guzman, T., et al. Fundamental differences in dedifferentiation and stem cell recruitment during skeletal muscle regeneration in two salamander species. Cell Stem Cell. 14 (2), 174-187 (2014).
- Tassava, R. A., Mescher, A. L. The roles of injury, nerves, and the wound epidermis during the initiation of amphibian limb regeneration. Differentiation. 4 (1), 23-24 (1975).
- Hay, E. D., Fischman, D. A. Origin of the blastema in regenerating limbs of the newt Triturus viridescens. An autoradiographic study using tritiated thymidine to follow cell proliferation and migration. Developmental Biology. 3, 26-59 (1961).
- Christensen, R. N., Tassava, R. A. Apical epithelial cap morphology and fibronectin gene expression in regenerating axolotl limbs. Developmental Dynamics. 217 (2), 216-224 (2000).
- Repesh, L. A., Oberpriller, J. C. Scanning electron microscopy of epidermal cell migration in wound healing during limb regeneration in the adult newt, Notophthalmus viridescens. American Journal of Anatomy. 151 (4), 539-555 (1978).
- Neufeld, D. A., Day, F. A., Settles, H. E. Stabilizing role of the basement membrane and dermal fibers during newt limb regeneration. Anatomical Record. 245 (1), 122-127 (1996).
- Singer, M., Saltpeter, M. M. Growth in Living Systems. Zarrow, M. X. , Basic Books. New York. (1961).
- Mescher, A. L. Effects on adult newt limb regeneration of partial and complete skin flaps over the amputation surface. Journal of Experimental Zoology. 195 (1), 117-128 (1976).
- Tassava, R. A., Garling, D. J. Regenerative responses in larval axolotl limbs with skin grafts over the amputation surface. Journal of Experimental Zoology. 208 (1), 97-110 (1979).
- Tornier, G. Der Kampf der Gewebe im Regeneratbei Begunsiigung der Hautregeneralion. Arch. Entwmech. 22, 348-352 (1906).
- Goss, R. J. Regenerative inhibition following limb amputation and immediate insertion into the body cavity. Anatomical Record. 126 (1), 15-27 (1956).
- Thornton, C. S. The effect of apical cap removal on limb regeneration in Amblystoma larvae. Journal of Experimental Zoology. 134 (2), 357-381 (1957).
- Thornton, C. S. The inhibition of limb regeneration in urodele larvae by localized irradiation with ultraviolet light. Journal of Experimental Zoology. 137 (1), 153-179 (1958).
- Tsai, S. L., Baselga-Garriga, C., Melton, D. A. Midkine is a dual regulator of wound epidermis development and inflammation during the initiation of limb regeneration. Elife. 9, (2020).
- Nowoshilow, S., et al. The axolotl genome and the evolution of key tissue formation regulators. Nature. 554 (7690), 50-55 (2018).
- Elewa, A., et al. Reading and editing the Pleurodeles waltl genome reveals novel features of tetrapod regeneration. Nature Communications. 8 (1), 2286(2017).
- Bryant, D. M., et al. A Tissue-Mapped Axolotl De Novo Transcriptome Enables Identification of Limb Regeneration Factors. Cell Reports. 18 (3), 762-776 (2017).
- Looso, M., et al. A de novo assembly of the newt transcriptome combined with proteomic validation identifies new protein families expressed during tissue regeneration. Genome Biology. 14 (2), 16(2013).
- Abdullayev, I., Kirkham, M., Bjorklund, A. K., Simon, A., Sandberg, R. A reference transcriptome and inferred proteome for the salamander Notophthalmus viridescens. Experimental Cell Research. 319 (8), 1187-1197 (2013).
- Burns, J. A., Zhang, H., Hill, E., Kim, E., Kerney, R. Transcriptome analysis illuminates the nature of the intracellular interaction in a vertebrate-algal symbiosis. Elife. 6, (2017).
- Nakamura, K., et al. A transcriptome for the study of early processes of retinal regeneration in the adult newt, Cynops pyrrhogaster. PLoS One. 9 (10), 109831(2014).
- Smith, J. J., et al. A chromosome-scale assembly of the axolotl genome. Genome Research. 29 (2), 317-324 (2019).
- Arenas Gomez, C. M., Woodcock, R. M., Smith, J. J., Voss, S. R., Delgado, J. P. Using transcriptomics to enable a plethodontid salamander (Bolitoglossa ramosi) for limb regeneration research. BMC Genomics. 19 (704), (2018).
- Fei, J. F., et al. Application and optimization of CRISPR-Cas9-mediated genome engineering in axolotl (Ambystoma mexicanum). Nature Protocols. 13 (12), 2908-2943 (2018).
- Flowers, G. P., Timberlake, A. T., McLean, K. C., Monaghan, J. R., Crews, C. M. Highly efficient targeted mutagenesis in axolotl using Cas9 RNA-guided nuclease. Development. 141 (10), 2165-2171 (2014).
- Khattak, S., et al. Optimized axolotl (Ambystoma mexicanum) husbandry, breeding, metamorphosis, transgenesis and tamoxifen-mediated recombination. Nature Protocols. 9 (3), 529-540 (2014).
- Joven, A., Elewa, A., Simon, A. Model systems for regeneration: salamanders. Development. 146 (14), (2019).
- Johnson, K., Bateman, J., DiTommaso, T., Wong, A. Y., Whited, J. L. Systemic cell cycle activation is induced following complex tissue injury in axolotl. Developmental Biology. 433 (2), 461-472 (2018).
Réimpressions et autorisations
