Les expectorations synthétiques de la fibrose kystique (SCFM2) peuvent être utilisées en combinaison avec la microscopie confocale à balayage laser et le tri cellulaire activé par fluorescence pour observer les agrégats bactériens à haute résolution. Cet article détaille les méthodes permettant d’évaluer les populations agrégées pendant le traitement antimicrobien en tant que plate-forme pour de futures études.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Outils pour l’évaluation en temps réel d’un modèle d’infection à Pseudomonas aeruginosa
Dans cet article
Résumé
Résumé
Pseudomonas aeruginosa (Pa) est l’un des agents pathogènes opportunistes les plus courants associés à la fibrose kystique (FK). Une fois la colonisation pa établie, une grande partie des bactéries infectieuses forment des biofilms dans les expectorations des voies respiratoires. Il a été démontré que les biofilms de Pa isolés des expectorations de la FK se développent en petits agrégats denses d’environ 10 à 1 000 cellules qui sont organisés spatialement et présentent des phénotypes cliniquement pertinents tels que la tolérance aux antimicrobiens. L’un des plus grands défis de l’étude de la façon dont les agrégats de Pa réagissent à l’environnement changeant des expectorations est le manque de systèmes pertinents et robustes sur le plan nutritionnel qui favorisent la formation d’agrégats. À l’aide d’un milieu synthétique d’expectorations CF (SCFM2), l’histoire de vie des agrégats de Pa peut être observée à l’aide de la microscopie confocale à balayage laser (CLSM) et de l’analyse d’images à la résolution d’une seule cellule. Ce système in vitro permet l’observation de milliers d’agrégats de taille variable en temps réel, en trois dimensions et à l’échelle du micron. Au niveau individuel et au niveau de la population, la capacité de regrouper les agrégats par phénotype et par position facilite l’observation des agrégats à différents stades de développement et leur réponse aux changements dans le microenvironnement, tels que le traitement antibiotique, à différencier avec précision.
Introduction
Pseudomonas aeruginosa (Pa) est un agent pathogène opportuniste qui établit des infections chroniques chez les personnes immunodéprimées. Pour les personnes atteintes de la maladie génétique de la fibrose kystique (FK), ces infections peuvent s’étendre sur toute une vie. La mucoviscidose provoque l’accumulation d’expectorations visqueuses et riches en nutriments dans les voies respiratoires, qui deviennent colonisées par une variété d’agents pathogènes microbiens au fil du temps. Le Pa est l’un des agents pathogènes les plus répandus de la FK, colonisant les voies respiratoires dans la petite enfance et établissant des infections difficiles à traiter1. L’AP demeure un problème clinique important et est considérée comme l’une des principales causes de mortalité chez les personnes atteintes de mucoviscidose, malgré l’amélioration des schémas thérapeutiques au cours des dernières années2,3. Ce phénotype persistance et l’augmentation de la tolérance aux antibiotiques ont valu à Pa une place dans un groupe d’agents pathogènes identifiés par les Centers for Disease Control (CDC) et l’Organisation mondiale de la santé (OMS) comme des priorités de recherche pour le développement de nouvelles stratégies thérapeutiques - les agents pathogènes ESKAPE4.
Comme d’autres agents pathogènes ESKAPE, la résistance aux antibiotiques acquise est courante dans le Pa,mais il existe également de nombreuses propriétés intrinsèques qui contribuent à la tolérance aux antimicrobiens du Pa. Parmi ceux-ci se trouve la capacité de Pa à former des agrégats-grappes très denses d’environ 10 à 1 000 cellules, qui peuvent être observées dans de multiples infections, y compris les expectorations des patients atteints de mucoviscidose5,6. Semblables à Pa étudiés dans d’autres systèmes de biofilm, les agrégats de Pa présentent des phénotypes cliniquement pertinents tels qu’une résistance accrue aux antibiotiques et l’activation de la communication cellule-cellule (quorum sensing (QS)). Par exemple, il a été démontré que les agrégats de Pa utilisent des comportements régulés par QS pour lutter contre d’autres microbes et tolèrent des traitements antimicrobiens tels que la production de pyocyanine7. La capacité d’étudier de tels comportements offre un aperçu passionnant des écosystèmes bactériens dans un environnement similaire à celui dans lequel ils existent dans le corps humain.
L’un des plus grands défis de l’étude de la façon dont les agrégats de Pa réagissent à l’environnement changeant des expectorations est le manque de systèmes pertinents et robustes sur le plan nutritionnel qui favorisent la formation d’agrégats. Une grande partie de ce que l’on sait sur le Pa a été découverte à l’aide de systèmes in vitro dans lesquels les cellules se développent planctoniquement ou dans une architecture caractéristique de « champignon » attachée à la surface qui n’a pas été observée in vivo8. Alors que les modèles classiques de croissance du biofilm, tels que les cellules d’écoulement ou la gélose solide, ont fourni des connaissances approfondies et précieuses sur les comportements bactériens et les mécanismes de tolérance aux antibiotiques, ces résultats ne se traduisent pas toujours in vivo. De nombreux modèles in vitro ont une capacité limitée à imiter l’environnement de croissance du site d’infection humaine, ce qui nécessite des études in vivo coûteuses. À leur tour, de nombreux modèles in vivo n’ont pas la flexibilité et la résolution offertes par les techniques in vitro.
Les expectorations synthétiques de fibrose kystique (SCFM2) sont conçues pour fournir un environnement de croissance de l’AP similaire à celui ressenti lors d’une infection chronique dans le poumon de la FK. SCFM2 comprend des sources nutritionnelles identifiées dans la sputa de FK expectorée en plus de la mucine, des lipides et de l’ADN. La croissance du Pa dans SCFM2 nécessite un ensemble de gènes presque identique à celui requis pour la croissance des expectorations réelles et soutient la formation naturelle d’agrégats de Pa 9,10. Après l’inoculation, les cellules planctoniques forment des agrégats dont la taille augmente par expansion. Les cellules individuelles (appelées migrants) sont libérées des agrégats, migrent vers des zones non colonisées et forment de nouveaux agrégats10. Cette histoire de vie peut être observée à l’aide de CLSM et de l’analyse d’images à la résolution d’une seule cellule. Les agrégats de Pa formés dans SCFM2 sont de tailles similaires à celles observées dans le poumon CF10. Ce modèle permet l’observation de multiples agrégats de taille variable en temps réel et en trois dimensions à l’échelle du micron. La microscopie en accéléré permet de suivre des milliers (~ 50 000) d’agrégats en une seule expérience. L’utilisation d’un logiciel d’analyse d’images permet de quantifier les phénotypes agrégés à partir de micrographies, y compris le volume agrégé, la surface et la position en trois dimensions au 0,1 μm le plus proche, à la fois au niveau de l’agrégat individuel et au niveau de la population. Avoir la capacité de regrouper les agrégats par phénotype et position permet la différenciation des agrégats à différents stades de développement avec précision, ainsi que leur réponse à un microenvironnement changeant6,11.
L’application de SCFM2 pour étudier les agrégats de Pa dans des essais à faible volume et à haut débit en fait un modèle flexible et rentable. En tant que milieu défini, SCFM2 offre uniformité et reproductibilité sur plusieurs plates-formes, fournissant une méthode nutritionnellement et physiquement pertinente pour étudier les agrégats de Pa in vitro9. Les applications incluent son utilisation en combinaison avec CLSM pour observer l’organisation spatiale et la tolérance aux antibiotiques à haute résolution (comme décrit dans ce document sur les méthodes). La capacité d’effectuer des expériences qui fournissent des données en temps réel à l’échelle du micron permet d’étudier les interactions intra-espèces et inter-espèces telles qu’elles peuvent se produire in vivo. Par exemple, SCFM2 a déjà été utilisé pour étudier la dynamique spatiale de la communication cellule-cellule dans des populations agrégées via un réseau de systèmes utilisés par Pa pour réguler plusieurs gènes qui contribuent à la virulence et à la pathogenèse6.
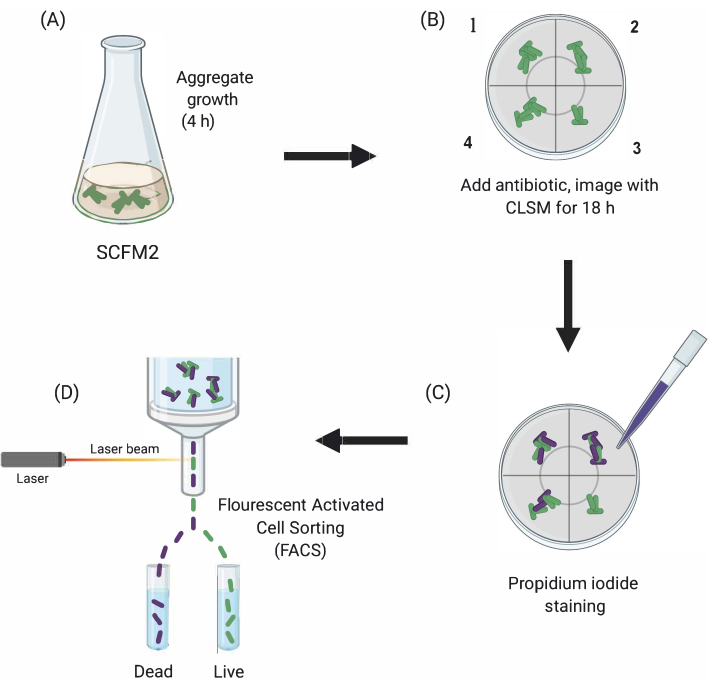
Figure 1: Représentation graphique des principales étapes expérimentales. (A) SCFM2 est inoculé avec des cellules Pa et autorisé à former des agrégats dans une boîte de culture à fond de verre. (B) Les agrégats sont transférés au microscope confocal et un antibiotique est ajouté. Trois répliques techniques (chambres 1 à 3) et un puits de contrôle (4) de SCFM2 inoculé sans traitement antibiotique sont représentés. Les agrégats sont imagés à l’aide de CLSM au cours de 18 h. (C) Après l’imagerie initiale de 18 heures, les agrégats sont traités avec de l’iodure de propidium pour visualiser les cellules mortes et imagés à l’aide de CLSM (D) Les agrégats avec le phénotype souhaité sont séparés de SCFM2 à l’aide de FACS. Abréviations : SCFM2 = milieu d’expectorations synthétiques de fibrose kystique; Pa = Pseudomonas aeruginosa; CLSM = microscopie confocale à balayage laser; FACS = tri cellulaire activé par fluorescence. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Ici, l’utilité de SCFM2 pour étudier l’impact du traitement antibiotique sur les agrégats pa en temps réel est démontrée, suivie de l’utilisation d’une approche de tri cellulaire pour isoler des populations d’agrégats avec des phénotypes distincts pour une analyse en aval(Figure 1).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
1. Préparer un milieu synthétique de fibrose kystique (SCFM2)
NOTE: La préparation de SCFM2 comprend trois étapes principales décrites ci-dessous (Figure 2). Pour plus de détails et de références, voir9,10,12.

Figure 2: Préparation et inoculation du milieu SCFM2. (A) La base tamponnée est préparée à l’aide des sels et des acides aminés énumérés dans les tableaux 1 et 2. La base tamponnée peut être conservée à 4 °C jusqu’à 30 jours, mais doit être protégée de l’exposition à la lumière. (B) La mucine et l’ADN sont ajoutés à une aliquote de base tamponnée et dissous en solution pendant la nuit à 4 °C. (C) Des lipides et des stocks supplémentaires sont ajoutés à la solution de nuit et incubés à 37 °C avec agitation à 250 tr/min pendant 20 min. Le SFCM2 est ensuite inoculé avec des cellules lavées en phase logarithmique à un OD600 = 0,05. Abréviations : SCFM2 = milieu d’expectorations synthétiques de la fibrose kystique. Veuillez cliquer ici pour voir une version agrandie de cette figure.
- Stérilisation de la mucine porcine
- Préparer la mucine stérile à une concentration finale de 5 mg/mL dans scFM2. Par exemple, pour un volume de 5 mL de SCFM2, peser 25 mg de mucine de type II dans une boîte de Petri stérile et placer dans un stérilisateur ultraviolet (UV) pendant 4 h, en agitant doucement toutes les heures.
- Après 4 h, transférer la mucine traitée aux UV dans des tubes autoclavés de 1,7 mL dans des conditions stériles et conserver à -20 °C.
- Pour confirmer la stérilisation complète, dissoudre un échantillon de mucine dans un liquide stérile, tel que de l’eau ou du bouillon Luria Bertani (LB), et observer au microscope.
REMARQUE: La mucine stérilisée peut être conservée à -20 ° C jusqu’à 6 mois.
- Préparation de la base tamponnée
- Préparer des solutions de sel et d’acides aminés en ajoutant les quantités appropriées en poids à l’eau désionisée indiquée dans le tableau 1. Filtrer-stériliser toutes les solutions mères à l’aide d’un filtre de 0,22 μm, envelopper dans du papier d’aluminium pour protéger de la dégradation par la lumière et conserver à 4 °C jusqu’à un mois.
- Préparer la base tamponnée en combinant 190 mL d’eau désionisée avec des solutions d’acides aminés et de sels par volumes indiqués dans le tableau 1. Ajustez la solution à un pH de 6,8 et augmentez jusqu’à un volume final de 250 mL. Filtrer-stériliser à l’aide d’un filtre de 0,22 μm et conserver à 4 °C jusqu’à 30 jours.
- La veille de l’expérience, aliquoter la quantité souhaitée de base tamponnée dans une fiole de culture en verre et ajouter de la mucine (5 mg/mL comme décrit à l’étape 1.1.1) et de l’ADN purifié de spermatozoïdes de saumon (0,6 mg/mL). Agiter doucement, envelopper dans du papier d’aluminium et laisser agir à 4 °C pendant la nuit pour permettre à la mucine et à l’ADN de se dissoudre en solution.
REMARQUE: Les aliquotes d’ADN de sperme de saumon doivent être décongelées sur de la glace, tourbillonnées et ajoutées à la base tamponnée et à la mucine. Les solutions stock de tryptophane, d’asparagine et de tyrosine doivent être préparées dans des solutions de NaOH (voir le tableau 1 pour les concentrations) au lieu d’eau désionisée. Gardez la base tamponnée et toutes les solutions de base enveloppées dans du papier d’aluminium pour les protéger de l’exposition à la lumière. La plupart des actions seront stables jusqu’à un mois. Les stocks qui se décolorent ne doivent pas être utilisés et doivent être remplacés avant utilisation.
- Ajout de stocks supplémentaires
- Le jour de l’expérience, ajouter les stocks énumérés dans le tableau 2 à la base tamponnée contenant de la mucine et de l’ADN.
REMARQUE: Préparez une solution fraîche de FeSO4 le jour de l’expérience, mais tous les autres stocks peuvent être préparés à l’avance et conservés pendant 30 jours à 4 ° C. 1,2-Dioleoyl-sn-glycero-3-phosphocholine (DOPC) contient du chloroforme. Manipuler avec prudence et ne pas utiliser près des flammes nues. Après l’ajout de DOPC, incuber SCFM2 à 37 °C en agitant (250 tr/min) pendant au moins 20 min (pour une culture de 5 mL). Cette période d’incubation permet au chloroforme du DOPC de s’évaporer. La fiole ne doit pas être étanche à l’air; au lieu de cela, couvrez l’ouverture de la fiole lâchement avec du papier d’aluminium.
- Le jour de l’expérience, ajouter les stocks énumérés dans le tableau 2 à la base tamponnée contenant de la mucine et de l’ADN.
2. Évaluation en temps réel de la tolérance aux antimicrobiens dans les agrégats bactériens
- Préparer des cultures du jour au lendemain
- La veille de l’expérience, inoculer 5 mL de bouillon LB avec plusieurs colonies de Pa PAO1-pMRP9-113 à partir d’une plaque de gélose LB contenant un antibiotique (carbénicilline 300 μg/mL). Cultiver toute la nuit à 37 °C avec agitation à 250 tr/min.
REMARQUE: Cultivez des cultures pendant la nuit avec l’ajout d’antibiotiques nécessaires à la sélection des plasmides requis (ici, le plasmide d’expression de la protéine fluorescente verte (GFP), pMRP9-1). Notez que les cellules Pa doivent être lavées avant que SCFM2 ne soit inoculé. Lb peut être substitué à d’autres milieux de laboratoire riches pour les cultures de nuit. Tous les isolats bactériens doivent être manipulés en utilisant les lignes directrices BSL-2 appropriées tout au long de ce protocole.
- La veille de l’expérience, inoculer 5 mL de bouillon LB avec plusieurs colonies de Pa PAO1-pMRP9-113 à partir d’une plaque de gélose LB contenant un antibiotique (carbénicilline 300 μg/mL). Cultiver toute la nuit à 37 °C avec agitation à 250 tr/min.
- Inoculer SCFM2
- Le jour de l’expérience, diluer pendant la nuit des cultures de Pa 1:10 (culture : milieu liquide) en inoculant 500 μL dans 5 mL de bouillon LB frais. Cultiver les cellules jusqu’à la phase logarithmique (60-90 min) à 37 °C avec agitation à 250 tr/min.
- Cultures de phase log centrifugeuse à 10 000 × g pendant 5 min. Laver les cellules en retirant le surnageant et en le réapposant dans 3 mL de solution saline tamponnée au phosphate stérilisée par filtre (PBS, pH 7,0). Répétez deux fois et resuspendez la pastille dans un volume final de 1 mL de PBS.
- Mesurer l’absorbance des cellules lavées à l’aide d’un spectrophotomètre à 600 nm (OD600), et calculer le volume de culture requis pour un OD600 de départ de 0,05 dans 5 mL de SCFM2. Inoculez pa dans le SCFM2 et vortexez doucement pour répartir les cellules partout. Pipetter 1 mL du SCFM2 inoculé dans chaque chambre d’un fond en verre à 4 puits, parabole optique, et incuber pendant 4 h statiquement à 37 °C.
REMARQUE: Le temps de doublement des cultures de Pa dépend de la souche et de la disponibilité de l’oxygène. Dans SCFM2, dans les conditions décrites ici, le temps de doublement de Pa est d’environ 1,4 h10.
3. Visualisation des agrégats pendant le traitement antibiotique avec la microscopie confocale à balayage laser (CLSM)
REMARQUE: Cette section décrit l’utilisation du microscope à balayage laser confocal et du logiciel de capture d’image pour l’imagerie des agrégats Pa dans SCFM2. L’objectif est d’observer et de caractériser la biomasse bactérienne restante (tolérante) après traitement aux antibiotiques. Les étapes décrites peuvent être effectuées avec succès sur d’autres microscopes confocaux, bien que le manuel d’utilisation de l’instrument doive être référencé pour des conseils spécifiques.
- Images de cultures Pa utilisant une chambre chauffée ou une microplaque chauffée montée sur l’étage du microscope pour maintenir une température ambiante de 37 °C. Démarrez le module d’incubation au moins 2 heures avant le début de l’expérience pour permettre à tous les appareils d’atteindre la température souhaitée et de réduire l’expansion et les mouvements pendant la collecte des données.
- Après 4 h, transférer les cultures SCFM2 contenant des cellules Pa à l’étage chauffé du microscope. Désigner 3 puits sur 4 comme répliques techniques pour le traitement antibiotique, et considérer le 4e puits comme un contrôle sans traitement, contenant uniquement des cellules Pa dans SCFM2, sans antibiotique. Identifiez les agrégats à l’aide de la microscopie à fond clair dans l’onglet Localiser avant toute excitation des rapporteurs fluorescents. Définissez une zone d’imagerie dans chaque puits et stockez sa position (coordonnées x-y-z) à l’aide du module Positions du logiciel d’imagerie.
- Utilisez un objectif d’immersion dans l’huile 63x pour visualiser des cultures Pa contenant le plasmide d’expression GFP pMRP9-1 dans SCFM2 avec une longueur d’onde d’excitation de 488 nm et une longueur d’onde d’émission de 509 nm. Prenez des images à l’aide de l’option z-stack dans le module Acquisition à des intervalles de 1 μm (total de 60 tranches). Utilisez le module de moyenne linéaire pour réduire la fluorescence d’arrière-plan dans le canal GFP dans le volume total des images z-stack de 60 μm (1 093,5 mm3). Prenez des images de contrôle de SCFM2 non ininoculé en utilisant des paramètres identiques pour déterminer la fluorescence d’arrière-plan pour l’analyse d’image.
REMARQUE: Les images sont acquises en produisant des images de pile z 8 bits de 512 pixels x 512 pixels (0,26 μm x 0,26 pixels) à 60 μm de la base du couvercle. - Utilisez l’option de série chronologique du logiciel d’imagerie pour capturer 60 tranches à chaque position (puits) à des intervalles de 15 minutes sur une période de 18 h. Utilisez la stratégie de mise au point définie dans le logiciel pour stocker un plan focal pour chaque position, qui est renvoyé à chaque point temporel tout au long de l’expérience.
- Après un total de 4,5 h d’incubation, imagez chaque position en utilisant les paramètres ci-dessus pour déterminer la biomasse agrégée dans chacun des quatre puits avant l’ajout d’antibiotique.
- Après 6 h d’incubation totale, ajouter un antibiotique à une concentration minimale inhibitrice (CMI) inférieure de 2 fois à chaque réplique. Pipettez directement et doucement au milieu du puits, juste en dessous de l’interphase air-liquide. Maintenir toutes les cultures dans la chambre confocale chauffée.
REMARQUE: Ici, le sulfate de colistine à une concentration de 140 μg / mL a été utilisé. - Commencez l’imagerie post-traitement antibiotique en cliquant sur l’option Démarrer l’expérience dans le programme d’imagerie.
REMARQUE: La concentration d’antibiotique utilisée dépend de l’antibiotique, de l’isolat de Pa et du fait que l’utilisateur souhaite examiner les effets de destruction ou de tolérance. Cette expérience utilise une dose unique. Des doses supplémentaires peuvent être ajoutées sans perturber les cultures si nécessaire.
4. Coloration à l’iodure de propidium des agrégats de Pa
REMARQUE: L’iodure de propidium (IP) est couramment utilisé comme réactif de coloration pour identifier les cellules bactériennes non viables (mortes) en culture. Ici, il est utilisé pour identifier les agrégats sensibles au traitement antibiotique appliqué à la section 3. Tout au long de ce protocole, l’expression et la détection de la GFP dans les cellules Pa sont utilisées comme principal indicateur de viabilité cellulaire. Cette dernière étape permet d’utiliser à nouveau l’imagerie confocale pour identifier le positionnement spatial des agrégats vivants/morts les uns par rapport aux autres. De plus, les agrégats sont identifiés comme vivants/morts pour un tri cellulaire plus approfondi en aval dans la section 5.
- Après 18 h, ajouter PI à chaque puits de la parabole optique inférieure à quatre chambres contenant des cultures SCFM2. Suivez les instructions du fabricant pour le volume de PI et le temps d’incubation(par exemple,~2 μL par mL de culture, ~20-30 min).
5. Isoler les cellules vivantes des agrégats à l’aide d’une approche FACS
REMARQUE: FACS présente une plate-forme puissante pour trier et isoler des groupes de cellules selon un phénotype marqué par fluorescence. Ici, le FACS est utilisé pour isoler des agrégats vivants (tolérants aux antibiotiques) à partir d’agrégats non viables.
- Après coloration avec de l’iodure de propidium, retirer les cultures de l’incubation et les transférer dans un instrument FACS dans un récipient isotherme pour maintenir 37 ° C.
- Exécutez 1 mL d’aliquotes de SCFM2 contenant des agrégats de Pa au débit le plus bas.
REMARQUE : Chaque aliquote contiendra environ 15 000 agrégats. - Pour détecter la GFP, illuminez les cellules avec un laser de 488 nm et enregistrez la hauteur du signal fluorescent à 530/30 nm. Visualisez la coloration PI par excitation avec un laser de 561 nm et enregistrez la hauteur du signal fluorescent à 610/20 nm. Effectuez le tri à l’aide d’une buse de 70 u.
REMARQUE : Les agrégats triés peuvent être regroupés de plusieurs manières en fonction de l’application de l’utilisateur. Dans ce cas, FACS a été utilisé pour trier les agrégats de Pa viables pour le séquençage de l’ARN en aval. Les applications alternatives sont discutées ci-dessous.
6. Analyse d’images
REMARQUE: La microscopie time-lapse génère de grandes quantités de données. Une expérience de 18 heures pour l’observation des agrégats Pa dans SCFM2 identifie environ 50 000 agrégats au fil du temps, qui ont le potentiel d’être caractérisés pour le volume et le positionnement spatial. Utilisez un logiciel d’analyse d’images pour quantifier la dynamique agrégée dans SCFM2 :
- Pour les études agrégées dans SCFM2, quantifier la fluorescence GFP de fond en créant un histogramme des comptes dans le canal GFP qui est produit pour SCFM2 et SCFM2 non inoculés avec la souche Pa PAO1 portant pMRP9-1. Pour vous assurer que les voxels GFP détectés sont en corrélation avec la biomasse Pa, définissez un voxel GFP+ comme ≥1,5 fois la valeur de fond GFP.
REMARQUE: La fluorescence de fond est définie comme la valeur de voxel la plus élevée de trois positions choisies au hasard, moyenne. Les nombres d’arrière-plans sont, en tant que mesure standard, soustraits de tous les pixels des images expérimentales par le logiciel d’analyse d’images. - Après soustraction d’arrière-plan dans le module Surpass, produisez des isosurfaces pour tous les voxels restants.
- Pour détecter des agrégats individuels, activez l’option Fractionner les objets et définissez les agrégats comme des objets avec des volumes de ≥5 μm3. Utilisez le module Vantage du logiciel d’analyse d’images pour calculer le volume, x-y-z et la somme des voxels GFP pour chaque objet individuel. Exportez ces données vers une plateforme statistique externe.
REMARQUE: Certains logiciels d’analyse d’images permettent l’exportation de plusieurs phentoypes quantitatifs à la fois, ce qui permet de calculer des corrélations. - Filtrer les données exportées du module Vantage par taille pour s’assurer qu’il ne reste aucun objet de <0,5 μm3 (biomasse dispersée). Pour chaque objet individuel dans l’image, calculez la distance par rapport à d’autres objets (agrégats) à l’aide du module Vantage du logiciel d’analyse d’images ou manuellement avec l’équation suivante.
d = sqrt((x2− x1)2 + (y2− y1)2 + (z2− z1)2) (1) - Utilisez les calculs SUM et MOYENNE pour trouver la biomasse totale et le volume agrégé moyen. Alternativement, exporter les données vers d’autres plates-formes ou scripts statistiques, par exemple,la distribution des agrégats à travers la biomasse comme discuté dans les résultats représentatifs (script non publié en collaboration avec le laboratoire Whiteley, Georgia Institute of Technology).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
Ce travail détaille les méthodes permettant d’observer les agrégats de Pa à haute résolution et dans un environnement similaire à celui de l’infection chronique du poumon CF9,10,12. SCFM2 fournit un système in vitro qui favorise l’agrégation naturelle des cellules Pa dans des tailles similaires à celles observées lors de l’infection réelle10. L’adaptabilité de SCFM2 en tant que ...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
Ce travail a introduit des méthodologies qui peuvent être combinées pour étudier les populations bactériennes agrégées en présence et en l’absence de traitement antibiotique. Le CLSM haute résolution permet de visualiser les changements dans la biomasse agrégée et l’orientation structurelle des agrégats en temps réel lorsqu’ils sont exposés à des antibiotiques. En outre, les caractéristiques physiques et structurelles de la biomasse qui restent après le traitement avec des antibiotiques peuvent être quantifiées, dans le ...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Les auteurs n’ont aucun conflit d’intérêts.
Remerciements
S.E.D est soutenu par des fonds de démarrage fournis par le Département de médecine moléculaire, l’Université de Floride du Sud, ainsi que par une subvention de recherche CFF (DARCH19G0), le N.I.H (5R21AI147654 - 02 (PI, Chen)) et l’USF Institute on Microbiomes. Nous remercions le laboratoire Whiteley pour sa collaboration continue impliquant des ensembles de données liés à ce manuscrit. Nous remercions le Dr Charles Szekeres d’avoir facilité le tri FACS. Les figures ont été créées par A.D.G et S.E.D à l’aide de Biorender.com.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Acides | |||
| Alanine | Acros Organics | 56-41-7 | |
| Arginine HCl | MP | 1119-34-2 | |
| Asparagine | Acros Organics | 56-84-8 | Préparé en 0,5 M NaOH |
| Cystine HCl | Alfa Aesar | L06328 | |
| Acide glutamique HCl | Acros Organics | 138-15-8 | |
| Glycine | Acros Organics | 56-40-6 | |
| Histidine HCl H2O | Alfa Aesar | A17627 | |
| Isoleucine | Acros Organics | 73-32-5 | |
| Leucine | Alfa Aesar | A12311 | |
| Lysine HCl | Alfa Aesar | J62099 | |
| Méthionine | Acros Organics | 63-68-3 | |
| Ornithine HCl | Alfa Aesar | A12111 | |
| Phénylalanine | Acros Organics | 63-91-2 | |
| Proline | Alfa Aesar | A10199 | |
| Serine | Alfa Aesar | A11179 | |
| Threonine | Acros Organics | 72-19-5 | |
| Tryptophane | Acros Organics | 73-22-3 | Préparé en 0,2 m NaOH |
| Tyrosine | Alfa Aesar | A11141 | Préparé en 1,0 m NaOH |
| Valine | Acros | Organics 72-18-4 | |
| Antibiotique | |||
| Carbenicilline | Alfa Aesar | J6194903 | |
| Stocks | |||
| CaCl2 * 2H2O | Fisher Chemical | C79-500 | |
| Dextrose (D-glucose) | Fisher Chemical | 50-99-7 | |
| 1,2-dioleoyl-sn-glycero-3-phosphocholine (DOPC) | Fisher (Avanti Polar Lipids) | 4235-95-4 | agiter 15-20 min à 37 ° ; C pour évaporer le chloroforme |
| FeSO4 * 7H2O | Acros Organics | 7782-63-0 | ce stock équivaut à 1 mg/mL, DOIT faire de |
| l’acide L-lactique | Alfa Aesar | L13242 | pH stock à 7 avec NaOH |
| MgCl2 * 6H2O | Acros Organics | 7791-18-6 | |
| N-acétylglucosamine | ; TCI | A0092 | |
| Solides | |||
| Mucine | porcine Sigma | M1778-100G | Stérilisation UV |
| Spermatozoïde de saumon ADN | Invitrogen | 15632-011 | |
| Teinture | |||
| Iodure de propidium | Alfa Aesar | J66764MC | |
| Sels K | |||
| 2SO4 | Alfa Aesar | A13975 | |
| KCl | Alfa Aesar | J64189 | ajouter le solide directement à la base tamponnée |
| KNO3 | Acros Organics | 7757-79-1 | |
| MOPS | Alfa Aesar | A12914 | ajouter le solide directement à la base tamponnée |
| NaCl | Fisher Chemical | S271-500 | ajouter le solide directement sur la base tamponnée |
| Na2HPO4 | RPI | S23100-500.0 | |
| NaH2PO4 | RPI | S23120-500.0 | |
| NH4Cl | Acros Organics | 12125-02-9 | ajouter du solide directement à la base tampon |
| Consommables | |||
| Tubes coniques (15 mL) | Olympus plastics | 28-101 | |
| Tubes coniques (50 mL) | Olympus plastics | 28-106 | |
| Tubes de culture avec bouchon d’air | Olympus plastics | 21-129 | |
| Plat à quatre chambres à fond de verre de 35 mm | CellVis | NC0600518 | |
| Luria Bertani (LB) bouillon | Genessee Scientific | 11-118 | |
| Solution saline tamponnée au phosphate (PBS) | Fisher Bioreagents | BP2944100 | |
| Pointes de pipette (p200) | Olympus plastics | 23-150RL | |
| Pointes de pipette (p1000) | Olympus plastics | 23-165RL | |
| Pipettes sérologiques (5 mL) | Olympus plastics | 12-102 | |
| Pipettes sérologiques (25 mL) | Olympus plastics | 12-106 | |
| Pipettes sérologiques (50 mL) | Plastiques Olympus | 12-107 | |
| Eau ultrapure (sans RNase/DNase) ; eau nanopure | Genessee Scientific | 18-194 | Eau nanopure utilisée pour la préparation des solutions du tableau 1 |
| Seringues (10 mL) | BD | 794412 | |
| Seringues (50 mL) | Filtre | 309653 | |
| 0,22 mm PES | 25-244 | ||
| PS cuvette semi-mico | Olympus plastics | 91-408 | |
| Logiciel | |||
| Biorender | Pour préparer les figurines | ||
| FacsDiva6.1.3 | Becton Dickinson, San Jose, CA | ||
| Imaris | Bitplane | version 9.6 | |
| Zen Noir | |||
| Équipement | |||
| FacsAriallu | Becton Dickinson, San Jose, CA | ||
| Microscope confocal à balayage laser LSM 880 | Zeiss |
Références
- Ramsay, K. A., et al. The changing prevalence of pulmonary infection in with fibrosis: A longitudinal analysis. Journal of Cystic Fibrosis. 16 (1), 70-77 (2017).
- Bessonova, L., et al. Data from the US and UK cystic fibrosis registries support disease modification by CFTR modulation with ivacaftor. Thorax. 73 (8), 731-740 (2018).
- Breuer, O., et al. Changing prevalence of lower airway infections in young children with cystic fibrosis. American Journal of Respiratory and Critical Care Medicine. 200 (5), 590-599 (2019).
- O'Donnell, J. N., Bidell, M. R., Lodise, T. P. Approach to the treatment of patients with serious multidrug-resistant Pseudomonas aeruginosa infections. Pharmacotherapy. 40 (9), 952-969 (2020).
- Bjarnsholt, T., et al. The in vivo biofilm. Trends in Microbiology. 21 (9), 466-474 (2013).
- Darch, S. E., et al. Spatial determinants of quorum signaling in a Pseudomonas aeruginosa infection model. Proceedings of the National Academy of Sciences of the United States of America. 115 (18), 4779-4784 (2018).
- Zhu, K., Chen, S., Sysoeva, T. A., You, L. Universal antibiotic tolerance arising from antibiotic-triggered accumulation of pyocyanin in Pseudomonas aeruginosa. PLoS Biology. 17 (12), 3000573(2019).
- Ciofu, O., Tolker-Nielsen, T. Tolerance and resistance of Pseudomonas aeruginosa biofilms to antimicrobial agents-how P. aeruginosa can escape antibiotics. Frontiers in Microbiology. 10, 913(2019).
- Turner, K. H., Wessel, A. K., Palmer, G. C., Murray, J. L., Whiteley, M. Essential genome of Pseudomonas aeruginosa in cystic fibrosis sputum. Proceedings of the National Academy of Sciences of the United States of America. 112 (13), 4110-4115 (2015).
- Darch, S. E., et al. Phage inhibit pathogen dissemination by targeting bacterial migrants in a chronic infection model. MBio. 8 (2), 00240(2017).
- Jorth, P., et al. Regional isolation drives bacterial diversification within cystic fibrosis lungs. Cell Host & Microbe. 18 (3), 307-319 (2015).
- Palmer, K. L., Aye, L. M., Whiteley, M. Nutritional cues control Pseudomonas aeruginosa multicellular behavior in cystic fibrosis sputum. Journal of Bacteriology. 189 (22), 8079-8087 (2007).
- Davies, D. G., et al. The involvement of cell-to-cell signals in the development of a bacterial biofilm. Science. 280 (5361), 295-298 (1998).
- Hartmann, R., et al. Quantitative image analysis of microbial communities with BiofilmQ. Nature Microbiology. 6 (2), 151-156 (2021).
- Stacy, A., et al. Bacterial fight-and-flight responses enhance virulence in a polymicrobial infection. Proceedings of the National Academy of Sciences of the United States of America. 111 (21), 7819-7824 (2014).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
