L’extrait translationnel de Leishmania (LTE) est un système d’expression de protéines eucaryotes libres dérivé du parasite unicellulaire, Leishmania tarentolae. Ce protocole optimisé rend la fabrication du LTE simple et rentable. Il convient à diverses applications axées sur l’expression multiparallèle et l’étude de protéines eucaryotes complexes et de leurs interactions.
Un abonnement JoVE est requis pour visualiser ce contenu. Connectez-vous ou commencez votre période d'essai gratuite.
Article de méthode
Production et optimisation de LTE, un système d’expression de protéines acellulaires dérivé de Leishmania tarentolae pour la production de protéines recombinantes
Dans cet article
Résumé
Résumé
Ce protocole décrit la production et l’optimisation d’un système d’expression de protéines acellulaires (CFPS) eucaryote dérivé du flagellé unicellulaire Leishmania tarentolae, appelé extrait translationnel de Leishmania ou LTE. Bien que cet organisme ait évolué à l’origine comme parasite des geckos, il peut être cultivé facilement et à moindre coût dans des flacons ou des bioréacteurs. Contrairement à Leishmania major, il n’est pas pathogène pour l’homme et ne nécessite pas de précautions particulières en laboratoire. Un autre avantage de l’utilisation de Leishmania pour le CFPS est que l’ajout d’un seul oligonucléotide antisens au CFPS, ciblant une séquence leader d’épissage conservée à l’extrémité 5' de tous les ARN codant pour des protéines, peut supprimer l’expression des protéines endogènes. Nous fournissons des procédures pour la rupture cellulaire et le traitement des lysats, qui ont été simplifiées et améliorées par rapport aux versions précédentes. Ces procédures commencent par de simples cultures en flacons. De plus, nous expliquons comment introduire de l’information génétique à l’aide de vecteurs contenant des sites d’initiation de traduction indépendants de l’espèce (SITS) et comment effectuer une optimisation simple des lots et un contrôle de la qualité pour assurer une qualité d’expression protéique constante.
Introduction
Dans les années 1960, les systèmes d’expression des protéines acellulaires ont joué un rôle central dans la découverte du code génétique1. Cependant, les systèmes d’expression de protéines procaryotes libres de cellules, principalement basés sur E. coli, dominent actuellement les applications de laboratoire et commerciales. Bien que les systèmes à base d’E. coli offrent des avantages tels que la rentabilité, l’évolutivité et des rendements d’expression élevés, ils sont confrontés à des défis lorsqu’ils produisent des protéines multidomaines dans leurs formes actives et facilitent l’assemblage de complexes protéiques 2,3. De nos jours, les formes couramment utilisées de synthèse eucaryote des protéines libres (CFPS) comprennent l’extrait de germe de blé (WGE), le lysat de réticulocytes de lapin (RRL) et le lysat de cellules d’insectes (ICL)4,5,6. Ce travail introduit un système alternatif eucaryote sans cellules, à la fois simple et évolutif, basé sur le parasite flagellé unicellulaire Leishmania tarentolae.
Leishmania tarentolae peut être cultivé facilement dans des flacons à l’aide de milieux rentables et peut également être mis à l’échelle dans des bioréacteurs pour obtenir une densité cellulaire plus élevée. La présence d’ARNm endogènes dans le lysat cellulaire, qui pourraient autrement entrer en compétition avec les messages introduits, peut être neutralisée à l’aide d’oligonucléotides antisens ciblant la séquence7 de l’épissage de l’ARNm conservée de Leishmania. Contrairement à son proche parent Leishmania major, qui provoque des maladies humaines, L. tarentolae infecte le gecko maure (Tarentolae mauritanica), ce qui le rend apte à la culture dans des environnements de laboratoire PC2 sans qu’il soit nécessaire de prendre des précautions particulières. Il a déjà été utilisé comme organisme transgénique pour l’expression in vivo des protéines8.
Pour faciliter l’amorçage de matrice dans les systèmes acellulaires, des séquences universelles ont été conçues sur la base de structures d’ARN polymériques qui améliorent l’initiation de la traduction9. Ces séquences de traduction indépendantes de l’espèce (SITS) sont applicables aux systèmes acellulaires procaryotes et eucaryotes et conviennent à l’introduction d’informations génétiques dans LTE. Bien que ce protocole ne fournisse pas d’explication détaillée de la construction vectorielle pour l’expression de protéines acellulaires LTE, l’optimisation et le contrôle de la qualité nécessitent des vecteurs appropriés contenant des fusions de fluorophores des protéines d’intérêt souhaitées en aval du site SITS. À cette fin, des vecteurs LTE appropriés ont été déposés dans le référentiel de gènes Addgene, tels que le vecteur pCellFree_G03, qui code une fusion eGFP N-terminale vers la protéine d’intérêt souhaitée à l’aide de sites de clonage Gateway.
La LTE a prouvé sa valeur dans un large éventail d’applications nécessitant l’expression de protéines, notamment l’analyse de l’auto-assemblage des protéines10,16, la production de protéines membranaires intégrales humaines17, la recherche sur des candidats médicaments antiviraux18, le développement d’enzymes utiles sur le plan biotechnologique19, le prototypage de biocapteurs de protéines20,21 et l’étude de produits biologiques à partir d’ankylostomes22. La LTE a également joué un rôle déterminant dans la cartographie des réseaux d’interaction protéine-protéine dans les domaines de la virologie et des structures cellulaires21,32. La LTE a été évaluée pour fonctionner de manière similaire à celle d’autres systèmes acellulaires eucaryotes dans l’expression de protéines complètes, monodispersées et non agrégées33, tout en offrant une production plus rentable et évolutive.
Ce protocole fournit des techniques pour cultiver et perturber l’organisme hôte, préparer le lysat et compléter une solution d’alimentation (FS) pour l’expression couplée des protéines de transcription/traduction. De plus, il comprend un protocole d’optimisation des lots de production. Dans la version initiale du système acellulaire Leishmania, des variations indésirables d’un lot à l’autre ont été observées dans les niveaux d’expression, la fraction de protéines pleine longueur et la présence d’agrégats de protéines, conduisant à l’élimination des lots34. Des améliorations ultérieures au protocole ont été apportées pour résoudre ce problème25. Le protocole actuel s’appuie sur ces améliorations, permettant d’optimiser les lots individuels pour l’expression et la taille maximales des protéines. Il y parvient en contrôlant étroitement la charge des perturbateurs cellulaires (mesurée par la densité optique à 600 nm ; OD600 nm) et la normalisation de la sortie de lysat résultante à l’aide de l’absorbance à 280 nm (Abs280 nm). De plus, il intègre une méthode permettant de compléter partiellement le lysat avec du rNTP et du magnésium pendant la fabrication, avec optimisation ultérieure de ces composants de la solution d’alimentation lors des expressions de test. Bien que cette optimisation soit présentée comme une option dans le protocole, elle est fortement recommandée par les auteurs.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Protocole
Ce protocole comprend des recettes et des étapes détaillées qui impliquent la culture, la centrifugation, la mesure de la fluorescence GFP à l’aide d’un lecteur de plaques multimode, la mesure de la DO de culture600 nm et l’évaluation du lysat Abs280 nm. Il couvre également la configuration et l’imagerie des gels protéiques SDS-PAGE. Les matériaux requis ou suggérés pour ce protocole sont répertoriés dans la feuille de calcul des matériaux. Il est important de noter que les ressources de laboratoire typiques telles que les composants de milieux, les centrifugeuses, les tubes, les spectrophotomètres et les configurations d’électrophorèse sur gel peuvent probablement être utilisées de manière interchangeable, sauf indication contraire. La figure 1 fournit un résumé du processus de fabrication LTE.
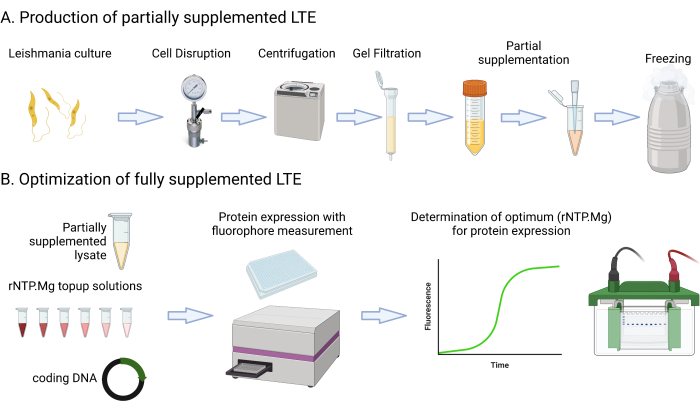
Figure 1 : Vue d’ensemble du protocole de fabrication LTE. Cette caricature fournit un résumé concis du protocole de fabrication LTE. Veuillez cliquer ici pour voir une version agrandie de cette figure.
1. Croissance des cultures de Leishmania tarentolae
- Préparez au moins 3 L de milieu de croissance TBGG (Bactotryptone 12 g/L, extrait de levure 24 g/L, glycérol 8 mL/L, glucose 1 g/L, KH2PO4 2,3 g/L, K2HPO4 2,5 g/L, voir le tableau des matières). Stérilisez le média à l’aide d’un filtre de 0,22 μm sous vide ou dans une configuration similaire.
- Conservez le milieu à température ambiante (RT), avec les derniers ajouts (Hemin, antibiotiques) ajoutés juste avant l’inoculation avec L. tarentolae. L’héminine (0,25 % v/v dans 50 % de triéthanolamine) est ajoutée à 0,2 % v/v, la pénicilline (10 000 unités/mL) et la streptomycine (10 000 μg/mL) sont mélangées à 0,5 % v/v.
REMARQUE : Le point de départ de ce protocole est une culture maintenue de 2 x 10 mL de L. tarentolae de type sauvage. Les cultures d’entretien sont cultivées à 27 °C dans des flacons de culture tissulaire standard de 50 mL avec une faible agitation (75 tr/min). De telles cultures de 10 ml peuvent être maintenues indéfiniment avec ~1/20 dilutions dans des stériles (TBGG + hémine, pénicilline, streptomycine) tous les 2-3 jours. Il est recommandé d’installer une enceinte de biosécurité standard dans un laboratoire PC2. cependant, les contaminations bactériennes ont tendance à être évitées par les antibiotiques ajoutés, tandis que les contaminations fongiques sont généralement éliminées par L. tarentolae. - Pendant deux jours, augmenter les cultures d’entretien de L. tarentolae à 200 mL (jour 1), puis à 2 L (jour 2) par dilutions de 1:10 avec un volume croissant de TBGG + hémine/antibiotiques chaque jour. Effectuer les deux dilutions dans des flacons en verre de 5 L stérilisés à l’autoclave (remplis jusqu’à un maximum de 1 L). La deuxième dilution doit avoir lieu dans l’après-midi entre 15 et 18 heures, avec l’intention de commencer la production de lysat le lendemain entre 8 et 11 heures.
REMARQUE : Ce protocole utilise le volume de départ minimum pour la production LTE (2 cultures de 1 L). Il est également possible d’étendre la culture jusqu’à 10 L pour la production LTE en incorporant une étape d’expansion supplémentaire (p. ex., jour 1 : 100 ml ; Jour 2 : 1 L ; Jour 3 : 10 L). Bien que ce protocole utilise des flacons à chicanes (voir le tableau des matériaux) pour cultiver L. tarentolae, en option, des bioréacteurs conventionnels conçus pour la croissance bactérienne avec des roues Rushton peuvent être utilisés, à condition que la vitesse d’agitation soit maintenue en dessous de 100 tr/min. L’amélioration de l’aération et du contrôle du pH dans les bioréacteurs prolonge généralement la croissance en phase logarithmique des cultures de L. tarentolae , ce qui permet d’utiliser une DO de récolte plus élevée de600 nm de 10 à l’étape 1.4. - Enregistrer la DO600nm de la culture en triple exemplaire via une dilution 1:10 dans du TBGG directement dans la cuvette du spectrophotomètre. Une plage de départ appropriée pour la fabrication du lysat est de600 nm OD = 4,0-8,0.
- Fournir un temps d’incubation supplémentaire si OD600nm < 4.0. Une culture avec OD600nm > 8 est utilisable et entraînera un plus grand volume de lysat d’expression acellulaire, mais avec une qualité inférieure en raison du début de la phase de croissance logarithmique. Placez les flacons de culture sur de la glace, en attendant les étapes suivantes.
REMARQUE : La mesure précise de la DO de culture finale de600 nm est essentielle, car elle est utilisée pour calculer le volume final des cellules concentrées avant la perturbation. Ce calcul remplace une méthode de pesage des granulés utilisée dans les versions antérieures de la fabrication LTE pour calibrer la concentration des cellules avant la perturbation34, afin de simplifier le protocole. Assurez-vous de diluer dans du TBGG pour une mesure de600 nm de diamètre, sinon le choc osmotique modifie la forme de la cellule, provoquant une erreur de mesure. La pipette mélange la dilution 1:10 pour la mesure de600 nm OD (directement dans la cuvette) quelques secondes avant de prendre la lecture spectrophotométrique, car les cellules de L. tarentolae se déposent rapidement avec un aspect trouble distinctif. Si le volume final de l’expression culture est considéré comme approximatif, il est également recommandé de peser les flacons à la récolte (avec une tare de flacon vide appropriée) pour obtenir une meilleure estimation du volume (à 1 g = 1 mL). La DO maximale de600 nm possible à partir de la croissance de L. tarentolae dans des flacons déflecteurs est de 15 à 20, bien que cela soit inapproprié pour la fabrication de lysat en raison de l’atteinte de la phase stationnaire.
2. Concentration des cultures de L. tarentolae
- Les cellules de Leishmania doivent être lavées et concentrées environ 60 fois avant d’être perturbées. Calculez le volume cible pour la concentration cellulaire sur la base deDO 600 nm = 300 pour le concentré final. L’équation est V = volume de récolte (mL) x (DO de récolte600 nm/300). Par exemple, en utilisant une culture de 2 L avec une DO derécolte de 600 = 5, le volume cible est de 33 mL.
REMARQUE : L’objectif OD600nm de 300 peut être modifié ; la production LTE précédente a utilisé des valeurs comprises entre 150 et 350. Des concentrations plus élevées de cellules en rupture auront tendance à produire des réactions finales d’expression acellulaire avec des rendements en protéines plus élevés, mais avec une tendance accrue pour les protéines vulnérables à s’agréger. OD600 nm = 300 représente une cible par défaut appropriée pour la production LTE. - Transférez les cultures récoltées dans des flacons centrifuges appropriés et faites-les tourner à 2500 x g pendant 10 min à 4 °C. Décanter soigneusement le surnageant dans les déchets de culture.
REMARQUE : Il est important de minimiser la perte de cellules dans le surnageant mis au rebut, car cela affecte le calcul de la charge de perturbation. Dans les protocoles de production LTE précédents, la concentration de cellules de L. tarentolae pour la rupture a été calibrée en faisant tourner le concentré de cellules dans un tube de microcentrifugation d’essai et en mesurant le poids de la pastille par rapport au poids total34. Ce protocole simplifié utilise plutôt une cible théorique de600 nm de DO pour le concentré, basée sur la DO de récolte mesurée de600 nm, et suppose une faible perte de cellules pendant la concentration et le lavage des cellules. - Laver la pastille cellulaire dans un tampon SEB (45 mM HEPES-KOH pH 7,6, 250 mM de saccharose, 100 mM de KOAc, 3 mM de Mg(OAc)2, maintenue sur glace) trois fois, en centrifugeant à chaque fois à 2500 x g pendant 10 min à 4 °C. Pour le premier lavage, remettre en suspension chaque 1 L de culture en granulés dans 100 mL de tampon SEB, puis les combiner dans une seule fiole de centrifugation. Pour le deuxième lavage, utilisez également 100 mL de SEB pour 1 L de la culture originale.
REMARQUE : Pour la remise en suspension finale des granulés, ajoutez un tampon SEB à 50 % du volume de remise en suspension cible final (étape 2.1). Cela permet d’alimenter soigneusement le concentré mélangé jusqu’au volume cible final exactement à l’étape 2.4. Chaque remise en suspension doit être aussi douce que possible pour éviter la lyse prématurée de L. tarentolae, par exemple, en faisant doucement tourner le SEB ajouté autour du granulé décanté ou en pipetant le SEB sur le granulé adhérant à la paroi du tube de centrifugation. Il peut être plus pratique de transférer les surnageants dans des tubes à centrifuger plus petits pour l’étape finale. - Versez le concentré remis en suspension dans un cylindre volumétrique en verre lavé approprié, puis complétez le volume jusqu’au volume cible (étape 2.1) à l’aide d’un SEB froid supplémentaire et mélangez délicatement.
3. Lyse du concentré de L. tarentolae
- Transférez le concentré de cellules dans le dispositif de cavitation d’azote (voir tableau des matériaux) pré-refroidi à 4 °C, pressurisez-le à 70 bars d’azote et incubez pendant 45 min sur de la glace.
REMARQUE : Bien que les perturbateurs de cavitation d’azote ne soient pas des articles de laboratoire courants, ils sont recommandés pour la production LTE. Des méthodes alternatives telles que la congélation-décongélation cellulaire et les perturbateurs de type presse française ont été essayées ; Cependant, l’activité d’expression des protéines était de <50 % par rapport à l’utilisation de la méthode de cavitation à l’azote. Le dispositif de cavitation à l’azote doit être soigneusement nettoyé avant utilisation et entre les passages, comme tous les récipients réutilisés qui entrent en contact avec le lysat cellulaire à partir de cette étape (comme le ballon récepteur). Un régime de nettoyage approprié implique un lavage avec des détergents de laboratoire suivi d’un rinçage abondant à l’eau déminéralisée. - Ouvrez l’évent du dispositif de cavitation d’azote et expulsez le lysat obtenu dans un récipient suffisamment robuste, tel qu’un ballon récepteur à vide sur de la glace. Inclinez le ballon récepteur pour vous assurer que tout le lysat résultant se dépose et peut être pipeté dans un tube à centrifuger frais ou un récipient similaire.
ATTENTION : Les perturbateurs de cavitation d’azote reposent sur la transition abrupte du concentré de la cellule de 70 bars d’azote à la pression ambiante, obtenue grâce à un fort écoulement d’abord de liquide puis d’azote à travers la soupape de sortie de l’appareil. La ventilation doit se faire à l’aide d’un équipement de protection individuelle (EPI) approprié dans une cagoule de sécurité chimique. Il y a un risque de briser le récipient de destination et de perdre le lysat, c’est pourquoi nous utilisons un récepteur à vide robuste au lieu d’une fiole générique. Si la soupape de sortie de l’appareil est un tube, évitez de placer le tube directement à l’intérieur du récepteur pour éviter une accumulation excessive de pression au point de ventilation.
4. Centrifugation du lysat cellulaire
- Transférez le lysat dans des tubes à centrifuger appropriés à force g et centrifugez à 10 000 x g pendant 15 min à 4 °C. Retirez le surnageant dans des tubes à centrifuger frais et similaires.
- Centrifugez le lysat à 30 000 x g pendant 15 min à 4 °C, puis retirez le surnageant final dans un tube de centrifugation frais ou un récipient similaire placé sur de la glace. Estimez le volume total.
5. Filtration sur gel du lysat cellulaire
REMARQUE : La filtration sur gel est utilisée pour éliminer le saccharose inclus dans le tampon SEB. Alors que le saccharose aide à stabiliser la machinerie cellulaire lors de la perturbation cellulaire, il diminue le rendement s’il est conservé dans les réactions d’expression des protéines.
- Installez un nombre suffisant de colonnes de filtration sur gel alimentées par gravité-10 (voir le tableau des matériaux) dans un format de rack qui leur permet de s’égoutter dans un bac de collecte ou un récipient similaire situé en dessous, en s’assurant qu’elles peuvent filtrer tout le volume de lysat à 2,5 ml par colonne. Prééquilibrez les colonnes en y faisant passer au préalable 10 mL de tampon EB à 4 °C (45 mM HEPES-KOH pH 7,6, 100 mM KOAc, 3 mM Mg(OAc)2).
REMARQUE : Toutes les étapes à partir de ce point bénéficient d’être effectuées dans une chambre froide à 4 °C. Cependant, il convient également de conserver tous les lysats et réactifs sur un bac à glaçons de paillasse. Une exception est l’étape de filtration sur gel, dans laquelle les auteurs placent un rack de colonnes à l’intérieur d’un réfrigérateur à 4 °C pendant le rebuffering. Dans les versions originales de ce protocole, les nouvelles colonnes de filtration sur gel étaient « bloquées » en tamponnant initialement le lysat et en éliminant la première sortie. Bien que cela ne soit pas considéré comme nécessaire, les colonnes doivent être rincées avec un tampon EB et stockées à 4 °C entre les lots de lysat. Le premier lysat de sortie peut avoir une activité d’expression protéique plus faible que les sorties suivantes en raison d’une certaine rétention de fond des composants du lysat sur la nouvelle colonne. - Ajoutez 2,5 ml de lysat dans chaque colonne et attendez qu’il passe dans la colonne. Ajouter 0,5 mL supplémentaire d’EB pour déposer le lysat dans la colonne tout en jetant l’éluat.
- Elutez le lysat filtré sur gel en ajoutant 2,5 ml supplémentaires d’EB dans chaque colonne, en recueillant la sortie en plaçant un plateau frais et propre ou un autre récipient sous les colonnes.
6. Supplémentation en lysat cellulaire
- Utilisez le spectrophotomètre nanodrop (voir Tableau des matériaux) pour mesurer l’Abs280nm du lysat filtré sur gel. S’il dépasse 60, diluez-le pour atteindre Abs280nm = 60 en utilisant un tampon EB supplémentaire de 4 °C.
REMARQUE : Alors que le contrôle de l’entrée de densité cellulaire dans la perturbation à l’aide del’OD 600 nm détermine approximativement l’intensité de sortie du lysat, la normalisation de l’Abs280 nm après la perturbation et le traitement du lysat améliore encore la cohérence des performances du lysat. Le Lysate Abs280nm peut être ajusté à la hausse et à la baisse, avec des conséquences sur le rendement et l’agrégation de l’expression des protéines (voir la section Discussion). Si le lysat non supplémenté indique un Absde 280 nm < 60, il peut être nécessaire d’inclure plus de biomasse de Leishmania dans l’étape de perturbation, c’est-à-dire d’augmenter la charge de perturbateur cellulaire à600 nm > 300 à l’étape 2.1. - Ajoutez 5 fois la solution d’alimentation (5 x FS, tableau 1) au lysat dans un rapport de 2:5 et mélangez soigneusement au vortex. Mettez-le dans des contenants appropriés (p. ex., des tubes de microfuge de 1,5 ml) et congelez-le dans de l’azote liquide. Si l’on suit les étapes facultatives 7.1 à 7.3 pour l’optimisation de l’expression LTE ci-dessous, utilisez la rNTP.Mg réduite de 5x FS du Tableau 1 au lieu de la valeur par défaut de 5x FS. Inclure 5 aliquotes de 100 μL pour la congélation à utiliser dans les expériences d’optimisation.
REMARQUE : La congélation avec la valeur par défaut de 5x PE dans un rapport de 2:5 crée une LDE complétée prête à l’expression, utilisée à une expression de 7 μL/10 μL (par conséquent, la 5x PE devient 1x PE dans la réaction finale). Cependant, les auteurs recommandent de suivre les étapes facultatives supplémentaires où la quantité par défaut de rNTP et de magnésium est fournie dans le FS 5x. S’ensuit une étape d’optimisation au cours de laquelle un mélange équimolaire des deux (appelé rNTP.Mg) est ajouté pour compléter les réactions de test à une valeur optimisée. Le FS 5x partiel contient également un oligonucléotide qui arrête l’expression endogène de l’ARNm (voir la section Introduction). La séquence de l’oligonucléotide est CAATAAAGTACAGAAACTGATACTTATATAGCGTT.
7. CQ et optimisation du LTE complété final
REMARQUE : Les étapes minimales nécessaires pour déterminer l’ajout « complémentaire » approprié de rNTP.Mg au rNTP réduit et au lysat supplémenté en magnésium impliquent l’expression de l’eGFP ou d’un fluorophore similaire (par exemple, sfGFP) sans partenaire de fusion. Des concentrations croissantes de rNTP.Mg sont ajoutées aux réactions pour déterminer le point auquel le niveau d’expression (mesuré en RFU eGFP via un lecteur de plaques multimode) est optimisé. Les terminaisons prématurées de l’eGFP, qui ne sont pas fluorescentes, deviennent évidentes en diminuant les RFU eGFP à des concentrations de rNTP.Mg trop élevées. Cependant, les dysfonctionnements du produit court de LTE se produisent plus fréquemment dans les protéines exprimées plus grandes (>50 kDa). Par conséquent, il est possible d’effectuer cette optimisation en utilisant un modèle plus grand que l’eGFP, en particulier s’il est disponible dans un vecteur d’expression approprié, fournissant une fusion de fluorophores que l’on souhaite produire par LTE pour une application ou une étude particulière (voir la section Résultats représentatifs).
- Décongeler une aliquote de 100 μL et mettre en place six réactions d’expression de 10 μL, chacune composée de 7 μL de lysat partiellement supplémenté à l’étape 6.2, de 1 μL de solution d’appoint conformément au tableau 2 et de 2 μL d’eau ultrapure contenant suffisamment de matrice de contrôle de l’ADN pour atteindre une concentration finale de 50 ng/μL dans la réaction.
- Incuber les réactions pendant 2 h à 25 °C et surveiller l’augmentation de la fluorescence GFP à l’aide d’un lecteur de plaques multimode.
REMARQUE : Les valeurs de configuration appropriées pour la GFP sont l’excitation à 485 nm (bande passante 5 nm), l’émission à 516 nm (bande passante 5 nm), avec un intervalle de lecture de 1 min pendant 2 h. - Classez les valeurs d’expression finales pour déterminer la concentration rNTP.Mg correspondant à l’UFR eGFP la plus élevée. Si des données cinétiques sont disponibles, un excès de rNTP.Mg sera également indiqué par une augmentation biphasique de la RFU eGFP pendant la période d’expression de 2 h (voir la section Résultats représentatifs).
- Une fois que la concentration rNTP.Mg d’appoint optimisée est déterminée, ajoutez-la à toutes les expressions protéiques ultérieures en utilisant le lot de LTE qui a été partiellement complété dans les étapes précédentes.
REMARQUE : Si l’aliquote à l’étape 6.2 est effectuée avec soin avec des volumes fixes, l’appoint peut être ajouté rétrospectivement à chaque aliquote sans décongélation, par exemple, avec les aliquotes placées sur de la glace sèche. Ces aliquotes sont maintenant entièrement complétées, car le bon complément de rNTP.Mg sera mélangé à chacune d’elles lorsqu’elles seront décongelées et mélangées pour être utilisées.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Résultats
Le but de l’expression des protéines acellulaires est de produire des protéines de pleine longueur sous une forme active repliée adaptée à un large éventail d’applications. L’extrait de LTE (Leishmania tarentolae ) a déjà été comparé à d’autres systèmes d’expression acellulaire procaryotes et eucaryotes, démontrant une grande capacité à éviter la troncature et l’agrégation lorsqu’il fonctionne de manière optimale, en particulier par rapport à l’expression acellulaire basée sur E. coli ...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Discussion
Des protocoles de création de LTE ont été publiés au cours de la dernière décennie7 et ont fait l’objet de mises à jour périodiques25,34. Cependant, les nouveaux venus dans la technique rencontrent souvent une courbe d’apprentissage abrupte, ce qui entraîne des retards dans l’obtention d’une expression protéique de haute qualité et à haut rendement. Des défis similaires ont été signalés par d’autres groupe...
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Déclarations de divulgation
Il n’y a pas d’intérêts financiers concurrents.
Remerciements
Les auteurs souhaitent remercier les nombreux membres du laboratoire Alexandrov qui ont contribué au développement des systèmes LTE au cours des 10 dernières années, en particulier Sergey Mureev qui a été le pionnier du système et a développé le site d’entrée des ribosomes SITS. La figure 1 a été créée par Biorender.com et reproduite sous licence.
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| -10 SuperDex 25 Colonnes | Cytiva | 17085101 | Colonnes de filtration Gel |
| Nitrogen Cavitation Perturbateur cellulaire | Parr Industries | 4635 ou 4639 | Perturbateur cellulaire |
| Hemin | Sigma-Aldrich | H5533 | Additif de culture |
| Pénicilline/Streptomycine 10000U/ml | Thermo-Fisher | 15140122 | Mélange |
| d’antibiotiquesOptiplate 384 | Perkin-Elmer | 6007290 | Plaque multipuits pour les expressions 10ul |
| Synthèse | IDT d’oligonucléotides | ; Oligo avec séquence CAATAAAGTACAGAAACTGATAC TTATATAGCGTT | |
| Créatine Phosphokinase | Sigma-Aldrich | 9001-15-4 | Enzyme |
| Tecan Spark | Tecan | ou similaire Lecteur de plaques multimode | |
| Chemidoc MP Imager | Biorad | ou similaire Gel SDS-PAGE Imager | |
| 4-12 % Bis-Tris Gels | Invitrogen | NW04125 | SDS-PAGE gels |
| Biophotomètre | Eppendorf | ou similaire Cuvette Specrophotomètre | |
| Nanodrop One | Thermofisher | Spectrophotomètre Nanodrop | |
| Centrifugeuse Avanti JXN-26 | Beckman Coulter | ou centrifugeuse similaire, avec rotors/tubes de 10K et 50K g | |
| Microcentrifugeuse 5424R Microcentrifugeuse | Eppendorf | ou similaire, avec tubes | |
| de microcentrifugation de 1,5 mlIncubateur à flacons Inova S44i | Eppendorf | ou similaire Agitateur d’incubateur à flacons adapté aux flacons de 5L | |
| Flacons | Flacons en verre à chicanes pour la croissance de la culture | ||
| Bactotryptone | BD | 211705 | Milieu de croissance |
| Extrait de levure | Merck | VM930053 | Milieu de croissance |
| Glycérol | N’importe quelle qualité analytique | ||
| Glucose | N’importe quelle qualité analytique | ||
| KH2PO4 | Toute qualité analytique | ||
| K2HPO4 | Toute qualité analytique | ||
| Eau UltraPure | Invitrogen | 10977-015 | Ou sortie de n’importe quel distributeur d’eau de type MilliQ |
Références
- Nirenberg, M. W., Matthaei, J. H. The dependence of cell-free protein synthesis in E.coli upon naturally occurring or synthetic polyribonucleotides. Proc Natl Acad Sci USA. 47 (10), 1588-1602 (1961).
- Caschera, F., Noireaux, V. Synthesis of 2.3 mg/ml of protein with an all Escherichia coli cell-free transcription-translation system. Biochimie. 99, 162-168 (2014).
- Kelwick, R., Webb, A. J., MacDonald, J. T., Freemont, P. S. Development of a Bacillus subtilis cell-free transcription-translation system for prototyping regulatory elements. Metab Eng. 38, 370-381 (2016).
- Ezure, T., et al. Cell-free protein synthesis system prepared from insect cells by freeze-thawing. Biotechnol Prog. 22 (6), 1570-1577 (2006).
- Harbers, M. Wheat germ systems for cell-free protein expression. FEBS Letters. 588 (17), 2762-2773 (2014).
- Kobs, G. Selecting the cell-free protein expression system that meets your experimental goals. Promega Corporation. 21, 6-9 (2008).
- Kovtun, O., et al. Leishmania cell-free protein expression system. Methods. 55 (1), 58-64 (2011).
- Basile, G., Peticca, M. Recombinant protein expression in Leishmania tarentolae. Mol Biotechnol. 43 (3), 273-278 (2009).
- Mureev, S., Kovtun, O., Nguyen, U. T., Alexandrov, K. Species-independent translational leaders facilitate cell-free expression. Nat Biotechnol. 27 (8), 747-752 (2009).
- Gambin, Y., et al. Single-molecule fluorescence reveals the oligomerization and folding steps driving the prion-like behavior of ASC. J Mol Biol. 430 (4), 491-508 (2018).
- Sierecki, E., et al. Rapid mapping of interactions between human SNX-BAR proteins measured in vitro by AlphaScreen and single-molecule spectroscopy. Mol Cell Proteomics. 13 (9), 2233-2245 (2014).
- Sierecki, E., et al. Nanomolar oligomerization and selective co-aggregation of alpha-synuclein pathogenic mutants revealed by single-molecule fluorescence. Sci Rep. 6, 37630(2016).
- Leitao, A., Bhumkar, A., Hunter, D. J. B., Gambin, Y., Sierecki, E. Unveiling a selective mechanism for the inhibition of alpha-synuclein aggregation by beta-synuclein. Int J Mol Sci. 19 (2), 334(2018).
- Gambin, Y., et al. Single-molecule analysis reveals self assembly and nanoscale segregation of two distinct cavin subcomplexes on caveolae. Elife. 3, e01434(2013).
- Ve, T., et al. Structural basis of TIR-domain-assembly formation in MAL- and MyD88-dependent TLR4 signaling. Nat Struct Mol Biol. 24 (9), 743-751 (2017).
- Guo, Z., et al. Subunit organisation of in vitro reconstituted HOPS and CORVET multisubunit membrane tethering complexes. PLoS One. 8 (12), e81534(2013).
- Ruehrer, S., Michel, H. Exploiting Leishmania tarentolae cell-free extracts for the synthesis of human solute carriers. Mol Membr Biol. 30 (4), 288-302 (2013).
- Varasteh Moradi, S., et al. Mapping Interactions among cell-free expressed Zika virus proteins. J Proteome Res. 19 (4), 1522-1532 (2020).
- Gagoski, D., et al. Cell-free pipeline for discovery of thermotolerant xylanases and endo-1,4-beta-glucanases. J Biotechnol. 259, 191-198 (2017).
- Ergun Ayva, C., et al. Exploring performance parameters of artificial allosteric protein switches. J Mol Biol. 434 (17), 167678(2022).
- Lau, D., et al. Fluorescence biosensor for real-time interaction dynamics of host proteins with HIV-1 capsid tubes. ACS Appl Mater Interfaces. 11 (38), 34586-34594 (2019).
- Ryan, S. M., et al. Novel antiinflammatory biologics shaped by parasite-host coevolution. Proc Natl Acad Sci USA. 119 (36), e2202795119(2022).
- McMahon, K. A., et al. Identification of intracellular cavin target proteins reveals cavin-PP1alpha interactions regulate apoptosis. Nat Commun. 10 (1), 3279(2019).
- Sierecki, E., et al. A cell-free approach to accelerate the study of protein-protein interactions in vitro. Interface Focus. 3 (5), 20230018(2013).
- Johnston, W. A., Moradi, S. V., Alexandrov, K. Adaption of the Leishmania cell-free expression system to high-throughput analysis of protein interactions. Methods Mol Biol. 2025, 403-421 (2019).
- Jung, W., et al. Cell-free formation and interactome analysis of caveolae. J Cell Biol. 217 (6), 2141-2165 (2018).
- Fontaine, F. R., et al. Functional domain analysis of SOX18 transcription factor using a single-chain variable fragment-based approach. MAbs. 10 (4), 596-606 (2018).
- Overman, J., et al. Pharmacological targeting of the transcription factor SOX18 delays breast cancer in mice. Elife. 6, e21221(2017).
- Kubala, M. H., et al. Mammalian farnesyltransferase alpha subunit regulates vacuolar protein sorting-associated protein 4A (Vps4A)--dependent intracellular trafficking through recycling endosomes. Biochem Biophys Res Commun. 468 (4), 580-586 (2015).
- Han, S. P., et al. Cortactin scaffolds Arp2/3 and WAVE2 at the epithelial zonula adherens. J Biol Chem. 289 (11), 7764-7775 (2014).
- Das Gupta, K., et al. Class IIa histone deacetylases drive toll-like receptor-inducible glycolysis and macrophage inflammatory responses via pyruvate kinase M2. Cell Rep. 30 (8), 2712-2728.e8 (2020).
- Leitão, A. D. G., et al. Selectivity of protein interactions along the aggregation pathway of α-synuclein. BioRxiv. , (2021).
- Gagoski, D., et al. Performance benchmarking of four cell-free protein expression systems. Biotechnol Bioeng. 113 (2), 292-300 (2016).
- Johnston, W. A., Alexandrov, K. Production of eukaryotic cell-free lysate from Leishmania tarentolae. Methods Mol Biol. 1118, 1-15 (2014).
- Hunter, D. J. B., Bhumkar, A., Giles, N., Sierecki, E., Gambin, Y. Unexpected instabilities explain batch-to-batch variability in cell-free protein expression systems. Biotechnol Bioeng. 115 (8), 1904-1914 (2018).
Accès restreint. Veuillez vous connecter ou commencer un essai pour afficher ce contenu.
Réimpressions et autorisations
