La méthode développée de marquage 13C-6-Glucose combinée à la spectrométrie de masse haute résolution par chromatographie liquide est polyvalente et jette les bases d’études futures sur les organes primaires et les voies impliquées dans la synthèse des métabolites secondaires dans les plantes médicinales, ainsi que sur l’utilisation complète de ces métabolites secondaires.
Article de méthode
13Marquage C6-glucose associé à la LC-MS : identification des organes primaires des plantes dans la synthèse des métabolites secondaires
Dans cet article
Résumé
Résumé
Cet article présente une méthode nouvelle et efficace pour certifier les organes primaires impliqués dans la synthèse des métabolites secondaires. En tant que métabolite secondaire le plus important chez Parispolyphylla var. yunnanensis (Franch.) Main. -Mzt. (PPY), la saponine de Paris (PS) a une variété d’activités pharmacologiques et le PPY est de plus en plus demandé. Cette étude a permis d’établir quatre traitements pour l’alimentation et la non-alimentation des feuilles, des rhizomes et des tiges du faisceau vasculaire 13C6-Glucose afin de certifier précisément les organes primaires impliqués dans la synthèse des saponines de Paris VII (PS VII). En combinant la chromatographie en phase liquide couplée à la spectrométrie de masse (LC-MS), les rapports 13C/12C de la feuille, du rhizome, de la tige et de la racine dans différents traitements ont été calculés rapidement et avec précision, et quatre types de rapports de pics d’ions isotopiques PS (M−) ont été trouvés : (M+1) −/M−, (M+2) −/M−, (M+3) −/M− et (M+4) −/M−. Les résultats ont montré que le rapport de 13C/12C dans les rhizomes des traitements d’alimentation par tige-faisceau vasculaire et rhizome était significativement plus élevé que celui des traitements sans alimentation. Par rapport au traitement non alimentaire, le rapport de molécules de PS VII (M+2) −/M− dans les feuilles a augmenté de manière significative sous les traitements d’alimentation des feuilles et des tiges. Simultanément, par rapport au traitement non alimentaire, le rapport des molécules de PS VII (M+2) −/M− dans les feuilles sous traitement au rhizome n’a montré aucune différence significative. De plus, le rapport des molécules de PS VII (M+2) −/M− dans la tige, la racine et le rhizome n’a montré aucune différence entre les quatre traitements. Par rapport au traitement non nourrissant, le rapport de la molécule de saponine II PARIS (PS II) (M+2) −/M− dans les feuilles sous traitement foliaire n’a montré aucune différence significative, et le rapport (M+3) −/M− des molécules de PS II dans les feuilles sous traitement foliaire était plus faible. Les données ont confirmé que l’organe primaire de synthèse du PS VII est les feuilles. Il jette les bases de l’identification future des organes primaires et des voies impliquées dans la synthèse des métabolites secondaires dans les plantes médicinales.
Introduction
Les voies de biosynthèse des métabolites secondaires chez les plantes sont complexes et diversifiées, impliquant des organes d’accumulation très spécifiques et diversifiés1. À l’heure actuelle, les sites de synthèse spécifiques et les organes responsables des métabolites secondaires dans de nombreuses plantes médicinales ne sont pas bien définis. Cette ambiguïté constitue un obstacle important à l’avancement stratégique et à la mise en œuvre de méthodes de culture conçues pour optimiser à la fois le rendement et la qualité des matériaux médicinaux.
La biologie moléculaire, la biochimie et les techniques de marquage isotopique sont largement utilisées pour démêler les voies de synthèse et les sites des métabolites secondaires dans les plantes médicinales 2,3,4,5, et chacune de ces méthodologies présente des forces et des limites uniques, telles que des différences d’efficacité et de précision. Les approches de biologie moléculaire, par exemple, offrent une grande précision pour localiser les sites dans les voies de biosynthèse, mais elles sont particulièrement chronophages. Leur utilité est encore limitée pour les espèces dépourvues de séquences génomiques accessibles au public, ce qui rend ces techniques moins viables dans de tels cas6. En revanche, les techniques de marquage isotopique, qui utilisent des rapports isotopiques tels que 3C/12C, 2H/1H et 18O/16O, constituent un moyen rapide et accessible d’étudier les mécanismes de synthèse, de transport et de stockage des métabolites secondaires 7,8. Ils peuvent révéler la distribution spatiale des composés organiques et des isotopes stables dans les feuilles, permettant ainsi de reconstituer les conditions environnementales vécues par les feuilles tout au long de leur cycle de vie9. De plus, l’application de marqueurs isotopiques externes, tels que le 13C6-Glucose 10 et le 13C 6-Phénylalanine11, permet la génération de métabolites secondaires marqués au carbone, améliorant ainsi notre compréhension de leur production et de leur fonction.
Les techniques traditionnelles de marquage des isotopes du carbone rencontrent des difficultés pour identifier les organes spécifiques responsables de la synthèse des métabolites secondaires en raison de la nature très spécifique à l’espèce de leurs voies de biosynthèse et de leurs mécanismes de transport. La chromatographie liquide couplée à la spectrométrie de masse (LC-MS) s’est imposée comme un instrument analytique essentiel dans ce domaine, offrant une méthode robuste pour le suivi des isotopes exogènes dans la synthèse chimique des médicaments et l’étude des processus in vivo tels que l’absorption, la distribution, le métabolisme et l’excrétion12. La sensibilité, la simplicité et la fiabilité supérieures de la LC-MS en font un choix idéal pour surveiller la production de métabolites secondaires dans les plantes13. Ces derniers temps, la LC-MS est devenue de plus en plus privilégiée pour son application dans les techniques de marquage isotopique externe, ce qui permet d’évaluer l’efficacité du marquage sur différents échantillons. Cette méthodologie fournit des informations essentielles sur les organes primaires impliqués dans la synthèse des métabolites secondaires dans les plantes médicinales, servant de complément inestimable aux méthodes biologiques pour identifier les organes de synthèse de ces composés14,15. Par conséquent, cette approche facilite non seulement la comparaison de l’efficacité du marquage entre divers spécimens, mais met également en lumière les organes clés impliqués dans la génération de métabolites secondaires des plantes, améliorant ainsi notre compréhension de leur biosynthèse.
Nous avons introduit une nouvelle méthode qui combine le marquage isotopique du carbone avec la détection LC-MS pour identifier les organes primaires responsables de la synthèse des métabolites secondaires dans les plantes médicinales. La saponine de Paris (PS) a une variété d’activités pharmacologiques telles que l’anticancéreux, l’immunomodulation et l’anti-inflammation16, et le PPY est en demande croissante17. Par conséquent, nous avons utilisé des plantules de PPY comme sujets de recherche et avons décrypté que les feuilles sont le principal organe de synthèse de la saponine de Paris VII (PS VII) (Figure 1B) en utilisant le marquage 13C6-Glucose associé à la méthode LC-MS. Notre approche comprenait quatre traitements différents impliquant l’alimentation en 13C-6-glucose des faisceaux vasculaires des feuilles, des rhizomes et de la tige, ainsi qu’un contrôle non alimentaire. Le choix du 13C6-glucose est stratégique, car il est rapidement métabolisé en acétyl coenzyme A par la respiration, ce qui facilite ensuite la synthèse du PS. En utilisant l’abondance naturelle de 13°C, nous avons utilisé un système de spectrométrie de masse par chromatographie en phase gazeuse et rapport d’isotopes stables (GC-IRMS) pour évaluer les rapports 13C/12C dans divers organes de la plante et pour analyser les rapports isotopiques des pics d’ions dans les molécules PS VII et Paris saponines II (PS II) (figure 1B). Notre méthodologie, qui s’appuie sur 13précurseurs de métabolites secondaires végétaux marqués au carbone et sur des techniques de spectrométrie de masse de pointe, offre une alternative plus simple et plus précise aux méthodes conventionnelles de marquage des isotopes du carbone. Cette nouvelle approche permet non seulement d’approfondir notre compréhension des organes impliqués dans la synthèse des métabolites secondaires chez les plantes médicinales, mais aussi de jeter des bases solides pour de futures explorations des voies de biosynthèse de ces composés.
Protocole
1. Préparation expérimentale
- Assurez-vous que pendant la croissance des plantes, l’humidité relative de la serre est de 75%, les températures jour/nuit sont de 20 °C/10 °C, la photopériode est composée de 12 h de jour et 12 h de nuit, et l’intensité lumineuse est de 100 μmol·m-2·s-1. Fournir une irradiation à l’aide de lampes à diodes électroluminescentes (DEL), en gardant une distance de 30 cm entre la lampe à DEL et le couvert végétal.
REMARQUE : La photopériode et l’intensité lumineuse sont en fonction du nombre d’heures d’ensoleillement pendant la période de croissance au Yunnan. L’irradiance est mesurée régulièrement par un capteur quantique (voir Tableau des matériaux). Apporter les modifications nécessaires aux paramètres environnementaux en fonction des caractéristiques de la plante médicinale. Une fois que ces conditions environnementales ont été soigneusement calibrées en fonction des caractéristiques de la plante et du profil d’ensoleillement régional, il est essentiel de maintenir la cohérence de ces paramètres pendant toute la durée de l’expérience. Des modifications arbitraires des paramètres environnementaux après leur établissement initial pourraient compromettre l’intégrité de l’expérience et la fiabilité des résultats. - Utiliser une approche hydroponique18 pour assurer la précision et la spécificité de notre expérience. Assurez-vous que les plants de PPY lavés de 2 ans (récoltés à Wenshan, province du Yunnan (104°11′E, 23°04′N) sont immergés dans une concentration standard de 1/4 de la solution nutritive de Hoagland pendant 3 jours pour s’adapter.
- Préparez la solution nutritive de Hoagland (voir la table des matières) selon les instructions ; ajoutez 1,26 g de poudre de Hoagland et 0,945 g de poudre de nitrate de calcium dans 4 L d’eau purifiée. Préparez la solution de glucose 13-C6 (voir le tableau des matériaux) comme décrit dans le manuel standard ; ajouter 0,2 g de poudre de 13C6-glucose dans 100 mL d’eau purifiée ou de solution nutritive de Hoagland.
- Préparez le réservoir hydroponique et la pompe à oxygène (Figure 2 ; voir le tableau des matériaux).
REMARQUE : Dans la configuration hydroponique, l’utilisation d’une solution de 13C6-glucose pour l’étiquetage contourne l’influence des micro-organismes du sol, garantissant ainsi que la solution contribue directement à la synthèse rapide des métabolites secondaires dans les plantes médicinales. Pour optimiser les conditions d’absorption du 13C6-Glucose par les plantes, il est impératif de réguler le débit de la pompe à oxygène entre 4 et 8 L/min. Ce débit contrôlé est crucial pour empêcher les plantules de flotter à la surface de l’eau, ce qui pourrait entraver considérablement leur capacité à absorber efficacement le 13C6-glucose. Le maintien des plantules immergées à la bonne profondeur permet une absorption efficace du composé de marquage, assurant ainsi le succès du processus de synthèse des métabolites dans le système hydroponique.
2. Fonctionnement de l’expérimentation d’étiquetage carbone
- Mettre en place quatre traitements et tracer les organes et les voies de synthèse de la PS VII et de la PS II dans la PPY pour démontrer que les feuilles sont l’organe primaire de synthèse de la PS.
- Dans le traitement 1, la plantule de PPY ne se nourrit pas ; dans le traitement 2, pulvériser les feuilles des plantules de PPY avec 0,2 % de 13C6-glucose ; dans le traitement 3, nourrir les rhizomes des plantules de PPY avec 0,2 % de 13C6-glucose ; dans le traitement 3, nourrir le semis de PPY au niveau de l’incision de la tige avec le 13C-6-glucose à 0,2 % (figure 2A).
REMARQUE : Le traitement 1 est défini comme un groupe témoin. Le traitement 2 est mis en place pour démontrer que les feuilles peuvent synthétiser le PS. Les traitements 3 et 4 sont mis en place pour démontrer que les rhizomes peuvent absorber le 13C6-Glucose. - Dans les traitements 1 et 2, cultivez les plantules de PPY dans la solution nutritive normale de Hoagland. Vaporisez 5 ml de solution de glucose 13C6 à 0,2 % une fois le matin, l’après-midi et le soir sur les feuilles du traitement 2.
- Dans les traitements 3 et 4, cultivez les semis de PPY dans la solution nutritive de Hoagland contenant 0,2 % de 13C6-glucose. Dans le traitement 4, utilisez un scalpel (voir le tableau des matériaux) pour couper les tiges des plantules de PPY par le milieu, mais gardez les faisceaux vasculaires attachés.
- Laissez chaque traitement être étiqueté pendant 3 jours et changez la solution nutritive tous les 1,5 jours. Réalisez l’expérience en utilisant un plan de blocs randomisés et répétez chaque traitement 3 fois.
REMARQUE : Lors de la pulvérisation des feuilles, il est important de placer un papier absorbant derrière les feuilles pulvérisées. Cela empêche les gouttelettes d’eau de tomber dans la solution nutritive située en dessous, ce qui pourrait autrement affecter les résultats de l’expérience. Les coupures dans les tiges ne sont pas toutes enlevées, mais sont attachées à des conduits visibles à l’œil nu.
- Dans le traitement 1, la plantule de PPY ne se nourrit pas ; dans le traitement 2, pulvériser les feuilles des plantules de PPY avec 0,2 % de 13C6-glucose ; dans le traitement 3, nourrir les rhizomes des plantules de PPY avec 0,2 % de 13C6-glucose ; dans le traitement 3, nourrir le semis de PPY au niveau de l’incision de la tige avec le 13C-6-glucose à 0,2 % (figure 2A).
3. Méthodes d’échantillonnage et de préparation
- Collectez séparément les feuilles, les tiges, les rhizomes et les racines de chaque traitement à la fin de l’expérience de 3 jours sur le 13-C-6-glucose. Lavez soigneusement les organes végétaux collectés pour éliminer les impuretés de surface.
REMARQUE : L’absence d’abondance de 13C peut être constatée par l’analyse LC-MS de la solution de lavage, qui prouve que le lavage est propre19. - Utilisez une étuve de séchage électrique à température constante (voir tableau des matériaux) pour sécher les organes végétaux lavés. Commencer à 105 °C pendant 30 min, puis régler à 60 °C jusqu’à consistance constante. Broyez les organes végétaux séchés en poudre à l’aide d’un broyeur rapide d’échantillons entièrement automatique (voir tableau des matériaux).
REMARQUE : La poudre est utilisée pour l’analyse quantitative des rapports PS VII, II et 13C/12C dans différents organes de la plante. - À l’aide d’une balance analytique électronique (voir le tableau des matériaux), peser avec précision 30 mg de poudre pour chaque échantillon et le placer dans 2 mL d’éthanol-eau à 75 % v/v. Utiliser un nettoyeur à ultrasons CNC (voir tableau des matériaux) et effectuer l’extraction par ultrasons à 25 °C pendant 20 min (60 kHz), répéter 2 fois ; Fusionner les solutions d’extraction et préparer trois échantillons parallèles20.
REMARQUE : Les erreurs de poids de l’échantillon doivent être minimisées. - Utilisez de l’azote pour sécher la solution d’extraction, puis dissolvez-la dans du méthanol chromatographique jusqu’à un volume de 1 mL. Avant l’injection, utilisez un filtre en phase organique de 0,22 μm (voir le tableau des matériaux) pour la filtration (figure 2B).
REMARQUE : Ne soufflez pas l’extrait lors du séchage avec de l’azote gazeux ; L’extrait doit être passé à travers une membrane microporeuse pour s’assurer que les impuretés interfèrent le moins possible.
4. Configuration et fonctionnement du LC-MS
- Réglage MS
- Activez la pompe à vide en basculant son interrupteur sur la position marche. Ouvrez la vanne principale de la bouteille de gaz argon, puis ajustez la soupape de pression partielle pour atteindre une pression cible d’environ 0,3 MPa. Ensuite, assurez-vous que la vanne d’azote gazeux est également ouverte.
- Lancez le logiciel de contrôle MS (voir Tableau des matériaux). Cliquez sur la source d’ionisation par électronébulisation chauffée (source HESI) dans le panneau du logiciel et entrez les paramètres, y compris la tension capillaire (3,0 kV pour le mode négatif), la température capillaire (350 °C), le débit de gaz de gaine (N2) (35 unités arbitraires), le débit de gaz auxiliaire (N2) (15 unités arbitraires)), par balayage complet basé sur la masse moléculaire du PS (opéré de m/z 100 à 1 500). Cliquez sur le bouton Appliquer pour activer la source d’ions.
REMARQUE : Attendez au moins 8 h pour assurer un degré de vide suffisant pour les conditions expérimentales. Vérifiez que la pression gazeuse de l’argon et de l’azote est suffisamment élevée avant l’analyse.
- Pré-exécution LC
- Préparez la phase mobile A en mélangeant de l’acide formique à 0,1 % avec de l’eau et utilisez de l’acétonitrile pour la phase mobile B (voir le tableau des matériaux). Dégazez les deux phases dans un sonicateur à bain d’ultrasons pendant 15 minutes pour éliminer les gaz dissous. Ensuite, connectez la phase mobile A à son passage de fluide respectif et faites de même avec la phase mobile B. Enfin, mélangez une solution de méthanol et d’eau 1:9 v/v pour le liquide de nettoyage et remplissez manuellement les flacons de la pompe et de l’injecteur.
REMARQUE : La fréquence du sonicateur à bain d’ultrasons est de 40 kHz.
- Préparez la phase mobile A en mélangeant de l’acide formique à 0,1 % avec de l’eau et utilisez de l’acétonitrile pour la phase mobile B (voir le tableau des matériaux). Dégazez les deux phases dans un sonicateur à bain d’ultrasons pendant 15 minutes pour éliminer les gaz dissous. Ensuite, connectez la phase mobile A à son passage de fluide respectif et faites de même avec la phase mobile B. Enfin, mélangez une solution de méthanol et d’eau 1:9 v/v pour le liquide de nettoyage et remplissez manuellement les flacons de la pompe et de l’injecteur.
- Etablissement de la méthode LC
- Sélectionnez le bouton « Configuration de l’instrument » pour accéder à la fenêtre d’édition de méthode.
- Appuyez sur le bouton « Nouveau » pour lancer la création d’une nouvelle méthode d’instrument LC-MS.
- Définissez le temps d’exécution total de la méthode LC. Ensuite, entrez les valeurs nécessaires pour la limite de pression, le débit total, le gradient de débit, la température de l’échantillon, la température de la colonne et le delta de température prête dans la fenêtre d’édition de méthode.
REMARQUE : Les réglages de la méthode de l’instrument LC-MS sont adaptés à l’analyte d’intérêt et au type de colonne de chromatographie liquide utilisée. Pour des résultats optimaux, utilisez un débit de 0,3 mL/min avec une colonne BEH C18 maintenue à 40 °C (voir le tableau des matériaux). L’élution en gradient est configurée comme suit : commencer à 10 % B, augmenter linéairement jusqu’à 30 % B sur 8 min, puis à 45 % B de 8 à 16 min, à 50 % B de 16 à 24 min, et à 70 % B de 24 à 30 min. Immédiatement après, rétablissez la pente à l’état initial de 10 % B en 0,1 min, en la maintenant à ce niveau pendant 2,9 min supplémentaires. Injecter un volume d’échantillon de 5 μL pour chaque analyse. Les réglages de la méthode de l’instrument LC-MS dépendent de la substance spécifique à analyser et du type de colonne de chromatographie liquide utilisée21.
- Acquisition MS
- Dans l’onglet Paramètres , choisissez le type d’expérience MS général ou MSn pour la configuration de la méthode MS. Entrez les valeurs nécessaires pour configurer le temps d’acquisition, la polarité (positive ou négative), la plage de masse, le numéro de la vanne de dérivation et la durée de la vanne de déviation. Après avoir entré ces détails, cliquez sur le bouton « Enregistrer » pour finaliser et enregistrer ces paramètres en tant que méthode d’instrument.
REMARQUE : Les paramètres par défaut sans colonne de chromatographie sont les suivants : temps d’acquisition, 2 min ; polarité, positive ou négative ; gamme de masse, 100 à 1 500.
- Dans l’onglet Paramètres , choisissez le type d’expérience MS général ou MSn pour la configuration de la méthode MS. Entrez les valeurs nécessaires pour configurer le temps d’acquisition, la polarité (positive ou négative), la plage de masse, le numéro de la vanne de dérivation et la durée de la vanne de déviation. Après avoir entré ces détails, cliquez sur le bouton « Enregistrer » pour finaliser et enregistrer ces paramètres en tant que méthode d’instrument.
- Effectuer la spectrométrie de masse à plusieurs étages selon les méthodes conventionnelles.
- Utilisez toujours le mode d’acquisition dépendante des données (DDA) pour la collecte de données en spectrométrie de masse à plusieurs étages. En mode DDA, le spectromètre de masse identifie les cinq ions les plus intenses lors de chaque balayage dans la première étape de la spectrométrie de masse en tandem, qui sont ensuite fragmentés et examinés dans la deuxième étape de la spectrométrie de masse en tandem.
REMARQUE : Les données MS et MS/MS collectées peuvent être utilisées pour une analyse ultérieure et une recherche dans la base de données.
- Utilisez toujours le mode d’acquisition dépendante des données (DDA) pour la collecte de données en spectrométrie de masse à plusieurs étages. En mode DDA, le spectromètre de masse identifie les cinq ions les plus intenses lors de chaque balayage dans la première étape de la spectrométrie de masse en tandem, qui sont ensuite fragmentés et examinés dans la deuxième étape de la spectrométrie de masse en tandem.
5. Acquisition, analyse et calcul manuels des données
- Acquisition et analyse des données
- Double-cliquez sur les fichiers bruts pour ouvrir tous les spectres de masse de MS. Calculez manuellement les valeurs de différence m/z entre l’ion et les ions de fragment correspondants.
- Importez les fichiers de données brutes des traitements de contrôle et d’échantillons et des blancs dans le logiciel d’analyse par spectrométrie de masse pour identifier les PS en calculant avec précision la masse et les fragments de PS.
REMARQUE : PS VII et PS II sont identifiés par comparaison avec les temps de rétention et la coélution de solutions étalons authentiques. La LC-MS détecte une série de petits pics aux positions des pics d’ions moléculaires. Le rapport de chaque série de pics d’ions isotopiques est constant. Lorsque des isotopes exogènes du 13C sont administrés, l’abondance totale du 13C dans la plante augmente, et les rapports de la série des pics d’ions isotopiques des métabolites secondaires de la plante changent. La tolérance maximale de l’erreur de masse est fixée à 5 ppm. - Balayez la plage de masse m/z 500-1 500 pour identifier le pic de base. Déterminez la masse moléculaire précise à 4 décimales près, en fonction de la masse moléculaire précise et du temps de rétention de la molécule cible. Rechercher l’aire du pic de l’écoulement d’ions isotopiques en série et dériver les valeurs pour M−, (M+1) −, (M+2) −, (M+3) − et (M+4) −. Lorsque la phase mobile contient de l’acide formique, les ions négatifs comprennent également (M+COOH) −, (M+COOH+1) −, (M+COOH+2) −, (M+COOH+3) − et (M+COOH+4) −.
REMARQUE : La sélection de pics dans la plage de masse m/z 500-1 500 améliore la précision de l’identification des pics d’ions moléculaires pour PS VII et PS II. Par exemple, le spectre massique d’ions négatifs du PS VII (C51H82O21, 1030.5349) s’ionise principalement avec les ions COOH dans le mélange acide formique-eau. Les ions isotopiques en série observés comprennent 1029.53−, 1030.54−, 1031.54−, 1032.55−, 1033.55− et s’étendant jusqu’à 1079.56−.
- Calcul des données
- Pour réduire l’effet de l’abondance naturelle de 13°C, calculez les rapports entre les courants ioniques marqués et non marqués pour chaque organe sous différents traitements, en vous concentrant spécifiquement sur les rapports (M+1)−/ M−, (M+2)−/M−, (M+3)−/ M− et (M+4)−/ M−. Pour différencier les isotopes marqués des isotopes naturels afin d’évaluer avec précision l’incorporation de 13C, calculez ces rapports pour n = 1, 2, 3, 4 à l’aide de l’équation (1).
Rapport = A (M+2) −/ AM− (1)
PS : (M+2) − inclure (M+2+COOH) − et (M+2) − ; M− comprennent (M+COOH) - et M−.
REMARQUE : Ici, M− fait référence aux zones de crête combinées des courants ioniques pour (M+COOH) − et M −, principalement ionisés avec COOH− dans l’acide formique-eau. A représente la surface du pic. Par exemple, les formules de calcul des ratios PS VII sont illustrées comme suit :
Rapport+1= (A1030.54+A1076.55)/(A1029.53+A1075.55)
Rapport+2= (A1031.54+A1077.55)/(A1029.53+A1075.55)
Rapport+3= (A1032.55+A1078.56)/(A1029.53+A1075.55)
Rapport+4= (A1033.55+A1079.56)/(A1029.53+A1075.55)
- Pour réduire l’effet de l’abondance naturelle de 13°C, calculez les rapports entre les courants ioniques marqués et non marqués pour chaque organe sous différents traitements, en vous concentrant spécifiquement sur les rapports (M+1)−/ M−, (M+2)−/M−, (M+3)−/ M− et (M+4)−/ M−. Pour différencier les isotopes marqués des isotopes naturels afin d’évaluer avec précision l’incorporation de 13C, calculez ces rapports pour n = 1, 2, 3, 4 à l’aide de l’équation (1).
Résultats
Pour confirmer que l’apport en13-C6-glucose dans les rhizomes était efficace, nous avons analysé plus en détail les rapports isotopiques 13C/12C dans les rhizomes. Les rapports isotopiques 13C/12C des traitements 3 et 4 étaient beaucoup plus élevés que ceux du traitement 2 (figure 1A). Les résultats ont indiqué que le 13-C-6-glucose des traitements 3 et 4 a pénétré dans les rhizomes par ingestion.
Les rapports des pics isotopiques de 13C, tels que (M+1) −/M−, (M+2) −/M−, (M+3) −/M− et (M+4) −/M−, restent généralement constants. Les composés marqués avec du 13C ajouté de manière exogène ont la même structure moléculaire, les mêmes poids moléculaires, les mêmes propriétés physicochimiques et les mêmes temps de rétention que leurs homologues non marqués. Cependant, lorsque ces composés marqués ont été analysés à l’aide de la spectrométrie de masse, les rapports de leur pic d’ions isotopiques ont changé. Dans notre étude, nous avons utilisé la LC-MS pour détecter la PS VII et la PS II dans quatre organes différents de la PPY dans divers traitements (Figure 3). Par rapport au traitement 1, les résultats ont indiqué une augmentation significative du rapport de PS VII (M+2) −/M− dans les feuilles du PPY traitées avec du 13C exogène (Figure 3B). En particulier dans le traitement 2, où les feuilles de PPY ont été pulvérisées avec du 13C6-Glucose, le PS VII marqué avec deux atomes de 13C a été synthétisé. Cependant, dans le traitement 4, le rapport des molécules de PS VII (M+2) −/M− dans les feuilles n’avait pas de différence significative entre le rhizome et le traitement non alimentaire, et les rapports des molécules de PS VII (M+1) −/M−, (M+3) −/M−, (M+4) −/M− dans la tige, le rhizome et la racine dans les quatre traitements n’ont montré aucune différence significative (Figure 3A, C,D). De plus, le rapport des molécules de PS II (M+2) −/ M− a augmenté lentement dans le traitement 2 (Figure 3F). Il n’y avait pas de différences notables dans les rapports des molécules de PS II (M+1) −/M− et (M+ 4) −/M− dans les feuilles entre les traitements 1 et 2 (Figure 3E, H), tandis que le rapport des molécules de PS II (M+3) −/M− a montré une diminution notable des feuilles dans le traitement 2 par rapport au traitement 1 (Figure 3G). Ces résultats suggèrent que la synthèse de PS VII se produit effectivement dans les feuilles traitées avec du 13C6-glucose, s’alignant sur la voie de biosynthèse connue du PSS.
Notre approche suggère que la feuille est l’organe principal de la synthèse de PS VII dans PPY, contrairement à la synthèse de PS II. Notamment, le PS VII marqué au 13C était absent dans le rhizome après le traitement foliaire avec du 13C 6-glucose, ce qui implique un transport lent du PS VII des feuilles vers les rhizomes. En revanche, le PS II marqué au 13C a été détecté dans le rhizome après des traitements de marquage du faisceau vasculaire de la tige et du rhizome, indiquant une possible synthèse du rhizome à ce stade et nécessitant une exploration plus approfondie des emplacements de synthèse du PS II. La détection exclusive du rapport (M+2) −/M− pour les molécules de PS VII dans les feuilles s’aligne sur le devenir métabolique du 13C6-glucose ; après absorption, il est métabolisé par glycolyse pour produire de l’acétyl-CoA avec deux isotopes 13C. Si l’on considère le PS comme un composé isoprénoïde, sa biosynthèse à partir de l’acétyl-CoA se fait soit par la voie de l’acide mévalonique (MVA), soit par la voie du 2-C-méthyl-D-érythritol-4-phosphate (MEP) (Figure 4), conduisant à la formation de (M+2) −/M− PS VII. Ainsi, notre étude délimite la feuille comme l’organe définitif pour la synthèse de PS VII dans le PPY.

Figure 1 : Rapport de l’isotope 13C/12C dans les rhizomes de quatre traitements. (A) Les rapports des isotopes 13C/12C dans les rhizomes des traitements 4 et 3 étaient beaucoup plus élevés que ceux des traitements 1 et 2, indiquant que le 13C-6-glucose avait pénétré de manière significative dans les rhizomes par l’alimentation des racines. Chaque colonne représente la moyenne (± ET) de trois répétitions. Les lettres sur les colonnes signifient significativement différentes dans le rapport entre l’isotope 13C et 12C dans quatre traitements (p < 0,05). Abréviation : PS = saponines de Paris. (B) La spectrométrie de masse à haute résolution de PS VII (C51H82O21, 1030.5349) a détecté son ion négatif avec un temps de rétention de 16,83 minutes. En raison de l’abondance naturelle du 13C (avec un poids moléculaire exact de 13,003, comparé à 12C à 12 000), une gamme de pics isotopiques comprenant (M−), principalement (M+1)−, (M+2)−, (M+3)− et (M+4)−, apparaissent au même temps de rétention que le pic d’ions moléculaires PS VII M−. Ces pics étaient principalement dus à l’ionisation du COOH dans l’eau d’acide formique. Un diagramme à barres agrandi met en évidence ces pics isotopiques. Les rapports de courant ionique de (M+1)−/M−, (M+2)−/M−, (M+3)−/M− et (M+4)−/M− ont été calculés. En analysant les changements dans ces ratios, nous avons pu suivre et déduire la biosynthèse des saponines. Ici, M− représentait les zones de crête combinées du courant ionique pour (M+COOH)- et M−. La figure 1B a été modifiée à partir de Wen et al.24. Veuillez cliquer ici pour voir une version agrandie de cette figure.

Figure 2 : Flux de travail d’étiquetage et d’intégration des données 13C6-Glucose. Les semis ont été étiquetés en pulvérisant et en donnant 0,2 % de 13C6-glucose pendant 3 jours ; ensuite, des extraits de chaque organe ont été analysés isotopiquement par LC/MS et GC/IRMS et combinés avec l’intégration des pics et des données pour l’analyse spécifique à l’organe de la synthèse du PS. (A) Un schéma illustrant l’alimentation du glucose dans différents organes. Les traitements 1 à 4 étaient non nourrissants, nourris respectivement en feuilles, tige-faisceau vasculaire et rhizome. (B) Les étapes de l’analyse LC-MS du liquide extrait du tissu PPY séché à l’aide d’un instrument de broyage et de soufflage d’azote. Abréviations : LC/MS = chromatographie liquide-spectrométrie de masse ; PPY = Parispolyphylla var. yunnanensis (Franch.) Main. -Mzt. ; PS = Saponine de Paris. Veuillez cliquer ici pour voir une version agrandie de cette figure.
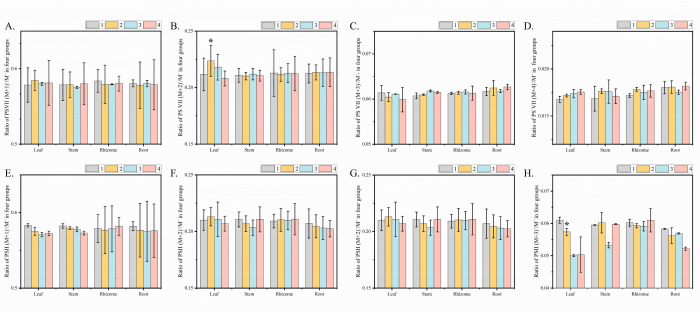
Figure 3 : Suivi de la biosynthèse de la saponine de Paris VII et de la saponine de Paris II via l’alimentation des organes végétaux en 13C6-glucose. (A-D) Le rapport des molécules de PS VII (M+1) −/M−, (M+2) −/M−, (M+3) −/M−, (M+4) −/M− dans chaque organe des quatre traitements. Le rapport des molécules de PS VII (M+2) −/M− a augmenté de manière significative dans les feuilles du traitement 2 et du traitement 3. Dans la tige, la racine et le rhizome, le rapport des molécules de PS VII (M+2) −/M− n’a montré aucune différence évidente entre les quatre traitements. (E-H) Le rapport des molécules de PS VII (M+1) −/M−, (M+2) −/M−, (M+3) −/M−, (M+4) −/M− dans chaque organe des quatre traitements. Par rapport au traitement 1, les rapports des molécules de PS II (M+2) −/ M− dans les feuilles n’ont pas eu de différence sous le traitement 2. Dans le traitement 2, le rapport des molécules de PS II (M+1) −/M− et (M+4) −/M− n’a pas de différences évidentes dans les feuilles par rapport au traitement 1. Les ratios de molécules de PS II (M+3) −/M− ont diminué dans les feuilles par rapport au traitement 1. Paris saponin VII, PS VII. Chaque colonne représente la moyenne (± ET) de trois répétitions. « * » indiquait une différence significative par rapport au traitement non alimentaire (test t à p < 0,01). Abréviation : PS = saponines de Paris. Veuillez cliquer ici pour voir une version agrandie de cette figure.

Figure 4 : Description du PS VII généré par le 13-C6-glucose exogène entrant dans la voie MVA. Schéma de principe du métabolisme de l’acétyl coenzyme A 13C6-Glucose pour générer des molécules de PS VII (M+2) −/M− via la voie MVA. Le carbone étiqueté est indiqué en rouge ; Le carbone non étiqueté est gris. Sous l’action de la glycolyse, le 13C-6-glucose est clivé en deux molécules d’acétyl coenzyme A(M+2)-, qui génère ensuite de l’isopentenyl pyrophosphate et du diméthyl propényl pyrophosphate par la voie MVA, puis génère de l’aténol cyclique via la génération catalytique de géranyl pyrophosphate synthase, de farnésyl pyrophosphate synthase, de squalène synthase, de squalène époxygénase, de cycloaténol synthase, de cycloarténol, puis oxydation, décarboxylation, réduction et autres réactions pour obtenir du cholestérol, du cholestérol par une série d’enzymes du cytochrome P450, des glycosyltransférases et de la saponine furostanoïde 26-O-β-glucosidase de la modification tardive de la formation de molécules de PS VII contenant deux carbones marqués. (M+2) - indique que le COOH- de deux carbones est ionisé à ce point, et le nombre de marqueurs pour deux carbones peut être dérivé en utilisant (M+2) −/M−. À l’aide de protocoles standard, le corps isotopique est identifié individuellement et les courants ioniques ont été divisés pour obtenir des données de marquage pour les isotopes. La valeur de M− est stable. Abréviation : PS = saponines de Paris ; PS VII = Paris saponin VII ; MVA = voie du mévalonate ; GPPS = Géranylgéranyl pyrophosphate synthase ; FPPS = Farnésylpyrophosphate synthase ; SQS = Squalène synthase ; SQE = Squalène époxygénase ; CYPs = enzymes du cytochrome P450 ; UGTs = Transférase glucuronique ; F26G = Saponine furostanoïde 26-O-β-glucosidase. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Discussion
La mise en œuvre réussie de ce protocole dépend de recherches approfondies sur les propriétés physiologiques des plantes, les tissus, les organes et les métabolites secondaires. L’approche de conception expérimentale décrite dans le protocole pose une base solide pour l’étude des voies de biosynthèse des métabolites secondaires des plantes. Les facteurs critiques de cette expérience sont (1) la détermination de l’âge des semis de plantes vivaces et (2) le choix du bon moment pour le marquage et la détection des isotopes. Les plantes médicinales sont classées en plantes vivaces et annuelles, chacune ayant des modèles différents de synthèse et d’accumulation de métabolites secondaires. Cette expérience vise à clarifier les organes primaires de synthèse des métabolites secondaires chez les plantes médicinales en analysant le taux de synthèse de ces métabolites. Par conséquent, il est essentiel de sélectionner avec soin les années et les stades de croissance qui correspondent à ces modèles et taux de synthèse.
Le PPY est une plante médicinale vivace, et la teneur en PS s’accumule d’année en année. Cependant, il a été démontré que le taux de synthèse du PS ne différait pas de celui du PPY22 des plantes vivaces. Dans le même temps, la taille plus petite des plants de 2 ans par rapport aux plus anciens facilite la culture hydroponique. Cette étude a donc utilisé des semis de PPY âgés de 2 ans. Cela garantit que les plantes sélectionnées présentent le taux le plus élevé de synthèse des métabolites secondaires. Il est crucial de reconnaître la variation des taux de synthèse et de transport des métabolites secondaires entre les différentes espèces23. La durée optimale pour la période d’étiquetage-détection est déterminée par ces taux. La recherche indique que la teneur en sucre et en PS des feuilles de PPY diminue en 3 jours24, ce qui suggère un processus de transport lent pour le PS en raison de leur poids moléculaire substantiel, peu susceptible d’être terminé dans ce laps de temps. Une durée de traitement inférieure à quelques heures peut entraîner des difficultés de synthèse et de détection inadéquates pour le PS 5,25 marqué. À l’inverse, prolonger le traitement au-delà de 3 jours risque de transvaser la PS des feuilles vers le rhizome, ce qui pourrait fausser les résultats expérimentaux. Par conséquent, une période de marquage intermédiaire de 3 jours est choisie pour minimiser l’interférence avec les organes - en particulier pour les méthodes de pulvérisation des feuilles et de marquage des rhizomes - assurant ainsi des résultats expérimentaux plus précis.
Des études antérieures de marquage isotopique sur Nicotiana tabacum26,27 et Brassica napus28 avaient montré une absorption et une intégration réussies du 13C-6-glucose dans les tissus végétaux. Dans notre recherche, nous nous sommes concentrés sur des semis de PPY cultivés en hydroponie et âgés de 2 ans, en mettant en œuvre des traitements d’alimentation au 13C-6-glucose pour les feuilles, les rhizomes et les faisceaux vasculaires de tige, ainsi que des traitements non nutritifs de contrôle. À l’aide de la détection par LC-MS, nous avons constaté qu’au troisième jour après le marquage, le rapport 13C/12C dans les rhizomes des traitements d’alimentation par faisceau vasculaire tige et rhizome était significativement plus élevé que chez les témoins non alimentés, confirmant l’assimilation efficace du 13C-6-glucose et le succès de notre approche de marquage (Figure 2). Dans notre étude, nous avons analysé simultanément quatre types de rapports de pics d’ions isotopiques pour les molécules de PS VII et PS II dans quatre organes différents de PPY : (M+1) −/M−, (M+2) −/M−, (M+3) −/M− et (M+4) −/M−. Il est important de noter que dans le traitement de marquage des feuilles, les ratios de la molécule PS VII (M+2) −/M− dans les feuilles étaient nettement plus élevés que dans le traitement non alimentaire. Le rapport des molécules de PS VII (M+2) −/M− dans les feuilles sous le rhizome et le traitement non alimentaire sans différence (Figure 3B). De plus, par rapport au traitement non alimentaire, le rapport de la molécule de saponines de Paris II (PS II) (M+2) −/M− dans les feuilles sous traitement foliaire sans différence significative, et les rapports de molécules de PS II (M+3) −/M− dans les feuilles sous traitement foliaire étaient plus faibles (Figure 3G). Les traitements de marquage du faisceau vasculaire tige et du rhizome ont montré des différences significatives dans les rapports des molécules de PS II (M+1) −/M− et (M+4) −/M− dans les rhizomes par rapport au traitement non alimentaire (Figure 3E, H).
Lors de l’adaptation de cette approche à d’autres plantes médicinales, il est crucial de sélectionner des composés marqueurs adaptés aux précurseurs des métabolites primaires et secondaires de la plante, en garantissant la spécificité des marqueurs. Si le composé cible est principalement synthétisé dans la tige, le composé de marquage doit pouvoir être efficacement transporté et métabolisé dans la tige. Réévaluer la voie de synthèse si les rapports isotopiques attendus, tels que (M+2) −/M− pour le PS VII, sont absents, confirmant ainsi la pertinence des composés de marquage. La concentration du composé de marquage dans la solution nutritive peut nécessiter un ajustement pour assurer une absorption et une intégration adéquates dans les composés cibles dans l’organe souhaité. Les paramètres de détection LC-MS peuvent nécessiter une optimisation pour détecter efficacement les métabolites d’intérêt marqués spécifiques. Cela pourrait impliquer d’ajuster les paramètres de spectrométrie de masse, tels que le mode d’ionisation, afin d’améliorer la sensibilité et la spécificité des composés uniques à l’espèce végétale et à l’organe étudiés. Si les rapports 13C/12C ne sont pas détectés dans les rhizomes à partir des traitements de marquage des faisceaux vasculaires tiges et des rhizomes, la concentration de 13C-6-glucose dans la solution nutritive Hoagland et la durée du marquage doivent être augmentées jusqu’à ce qu’il soit possible de le détecter. Les méthodes d’alimentation et les techniques d’analyse du 13-C-6-glucose établies dans cette étude devraient guider l’analyse et l’interprétation des résultats pour l’identification des organes de synthèse des métabolites secondaires chez diverses plantes médicinales.
Les traitements nourrissants et non alimentaires au 13-C-6-glucose pour les feuilles, les rhizomes et les faisceaux vasculaires de la tige dans cette expérience offrent une plus grande spécificité dans l’identification des organes de synthèse des métabolites secondaires par rapport aux méthodes traditionnelles de marquage des isotopes du carbone. Néanmoins, des défis subsistent. L’une des principales limites est l’absence d’un délai d’étiquetage-détection unique adapté à toutes les plantes médicinales. La sélection d’une période optimale améliore l’efficacité de l’étiquetage. De plus, l’utilisation de ratios pour analyser les résultats complique la différenciation des emplacements des groupes fonctionnels dans les isomères grands et complexes. Par conséquent, une analyse documentaire approfondie et des expériences préliminaires sont conseillées avant d’utiliser cette méthodologie. Cette stratégie garantit non seulement l’exactitude et l’efficacité, mais a également des implications importantes pour la biologie et la pharmacologie des plantes. L’intégration de cette méthode à la spectroscopie par résonance magnétique nucléaire, une technique de pointe pour l’analyse des structures de composés organiques, permet d’identifier avec précision les emplacements de marquage du 13C. Cette méthode ouvre la voie à l’exploration des voies de biosynthèse des métabolites secondaires des plantes, présentant une approche détaillée et efficace pour déterminer la spécificité des organes dans la synthèse des métabolites secondaires dans les plantes médicinales.
Déclarations de divulgation
Les auteurs ne déclarent aucun intérêt financier concurrent.
Remerciements
Ce travail a été financé par le programme de la jeunesse de la Fondation nationale des sciences naturelles de Chine (n° 82304670).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 0,1 % Eau acide formique | Chengdu Kelong Chemical Reagent Factory | 44890 | |
| 13C6-Glucose en poudre | MERCK | 110187-42-3 | |
| Acetonitrile | Chengdu Kelong Chemical Reagent Factory | 44890 | |
| AUTOSAMPLER VIALS | Biosharp Biotechnology Company | 44866 | |
| BEH C18 colonne | Waters,Milfor,MA | 1.7&mu ; m, 2.1 * 100 mm | |
| Nettoyeur à ultrasons CNC | Kunshan Ultrasound Instrument Co., Ltd | KQ-600DE | |
| Compound DiscovererTM ; logiciel | Thermo Scientific, Fremont, CA | 3 | |
| Compound DiscovererTM ; logiciel ; | Thermo Scientific,Fremont,CA | 3 | |
| Étuve | DHG-9146A | ||
| Balance analytique électronique | Sedolis Scientific Instruments Beijing Co., Ltd | SOP | |
| Ethanol ; | Chengdu Kelong Chemical Reagent Factory | 44955 | |
| Broyeur rapide d’échantillons entièrement automatique | Shanghai Jingxin Technology | Tissuelyser-48 | |
| Chromatographie en phase gazeuse-Rapport isotopique stable Spectromètre de masse | Thermo Fisher | Delta V Advantage | |
| Hoagland solution | Sigma-Aldrich | H2295-1L | |
| Réservoir hydroponique | JRD | 1020421 | |
| Logiciel Isodat | Thermo Fisher Scientific | 3 | |
| Chromatographie liquide Spectrométrie de masse haute résolution | Technologie Agilent | Agilent 1260 -6120 ; | |
| Instrument de fabrication d’azote | PEAK SCIENTIFIC | Genius SQ 24 | |
| Filtre de phase organique | Tianjin Jinteng Experimental Equipment Co., Ltd | 44890 | |
| Pompe à oxygène | Magic Dragon | MFL | |
| Capteur quantique | Highpoint | UPRtek | |
| Scalpel | Handskit | 11-23 | |
| Arrosage peut | CHUSHI | WJ-001 | |
| Xcalibur ; logiciel | Thermo Fisher Scientific | 4.2 |
Références
- Erb, M., Kliebenstein, D. J. Plant secondary metabolites as defenses, regulators, and primary metabolites: The blurred functional trichotomy. Plant Physiol. 184 (1), 39-52 (2020).
- Li, Y., Kong, D., Fu, Y., Sussman, M. R., Wu, H. The effect of developmental and environmental factors on secondary metabolites in medicinal plants. Plant Physiol Biochem. 148, 80-89 (2020).
- Liu, S., et al. Genetic and molecular dissection of ginseng (panax ginseng mey.) germplasm using high-density genic snp markers, secondary metabolites, and gene expressions. Front Plant Sci. 14, 1165349(2023).
- Chen, X., Wang, Y., Zhao, H., Fu, X., Fang, S. Localization and dynamic change of saponins in cyclocarya paliurus (batal.) iljinskaja. PloS One. 14 (10), e0223421(2019).
- Yuan, M., et al. Ex vivo and in vivo stable isotope labelling of central carbon metabolism and related pathways with analysis by lc-ms/ms. Nat Protoc. 14 (2), 313-330 (2019).
- Cavalli, F. M. G., Bourgon, R., Vaquerizas, J. M., Luscombe, N. M. Specond: A method to detect condition-specific gene expression. Genome Biol. 12 (10), 101(2011).
- Epron, D., et al. Pulse-labelling trees to study carbon allocation dynamics: A review of methods, current knowledge and future prospects. Tree Physiology. 32 (6), 776-798 (2012).
- Varman, A. M., He, L., You, L., Hollinshead, W., Tang, Y. J. Elucidation of intrinsic biosynthesis yields using 13c-based metabolism analysis. Microb Cell Fact. 13 (1), 42(2014).
- Meng-Meng, G., Zhen-Yu, Z., Yu, Z., Qiu-Lin, Y., Ying, W. Systematic extraction and stable isotope determination of different biomarkers from single leaf of reticulate vein plants. Journal of Shaanxi University of Science & Technology. 41 (01), 72-79 (2023).
- Zhang, H., et al. A convenient lc-ms method for assessment of glucose kinetics in vivo with d-[13c6]glucose as a tracer. Clin Chem. 55 (3), 527-532 (2009).
- Chassy, A. W., Adams, D. O., Waterhouse, A. L. Tracing phenolic metabolism in vitis vinifera berries with 13c6-phenylalanine: Implication of an unidentified intermediate reservoir. J Agric Food Chem. 62 (11), 2321-2326 (2014).
- Lozac'h, F., et al. Evaluation of cams for 14c microtracer adme studies: Opportunities to change the current drug development paradigm. Bioanalysis. 10 (5), 321-339 (2018).
- Sulyok, M., Stadler, D., Steiner, D., Krska, R. Validation of an lc-ms/ms-based dilute-and-shoot approach for the quantification of > 500 mycotoxins and other secondary metabolites in food crops: Challenges and solutions. Anal Bioanal Chem. 412 (11), 2607-2620 (2020).
- Serra, F., et al. Inter-laboratory comparison of elemental analysis and gas chromatography combustion isotope ratio mass spectrometry (gc-c-irms). Part i: Delta13c measurements of selected compounds for the development of an isotopic grob-test. J Mass Spectrom. 42 (3), 361-369 (2007).
- Jung, J. -Y., Oh, M. -K. Isotope labeling pattern study of central carbon metabolites using gc/ms. J Chromatogr B Analyt Technol Biomed Life Sci. 974, 101-108 (2015).
- Ding, Y. G., et al. The traditional uses, phytochemistry, and pharmacological properties of paris l. (liliaceae): A review. J Ethnopharmacol. 278, 114293(2021).
- Cunningham, A. B., et al. Paris in the spring: A review of the trade, conservation and opportunities in the shift from wild harvest to cultivation of paris polyphylla (trilliaceae). J Ethnopharmacol. 222, 208-216 (2018).
- Madikizela, L. M., Ncube, S., Chimuka, L. Uptake of pharmaceuticals by plants grown under hydroponic conditions and natural occurring plant species: A review. Sci Total Environ. 636, 477-486 (2018).
- Tagami, K., Uchida, S. Online stable carbon isotope ratio measurement in formic acid, acetic acid, methanol and ethanol in water by high performance liquid chromatography-isotope ratio mass spectrometry. Anal Chim Acta. 614 (2), 165-172 (2008).
- Li, Y., et al. The combination of red and blue light increases the biomass and steroidal saponin contents of paris polyphylla var. Yunnanensis. Ind Crops Prod. 194, 116311(2023).
- Wang, G., et al. Tissue distribution, metabolism and absorption of rhizoma paridis saponins in the rats. J Ethnopharmacoly. 273, 114038(2021).
- Peng, S., et al. Progress in the study of differences in the types and contents of steroidal saponins in paris. Polyphylla smith var. Chinensis (franch.) hara. Modernization of Traditional Chinese Medicine and Materia Medica-World Science and Technology. 24 (05), 2014-2025 (2022).
- Alami, M. M., et al. The current developments in medicinal plant genomics enabled the diversification of secondary metabolites' biosynthesis. Int J Mol Sci. 23 (24), 15932(2022).
- Wen, F., et al. The synthesis of paris saponin vii mainly occurs in leaves and is promoted by light intensity. Front Plant Sci. 14, 1199215(2023).
- Siadjeu, C., Pucker, B. Medicinal plant genomics. BMC Genomics. 24 (1), 429(2023).
- Tian, C., et al. Top-down phenomics of arabidopsis thaliana: Metabolic profiling by one- and two-dimensional nuclear magnetic resonance spectroscopy and transcriptome analysis of albino mutants. J Biol Chem. 282 (25), 18532-18541 (2007).
- Masakapalli, S. K., et al. Metabolic flux phenotype of tobacco hairy roots engineered for increased geraniol production. Phytochemistry. 99, 73-85 (2014).
- Schwender, J., Ohlrogge, J. B., Shachar-Hill, Y. A flux model of glycolysis and the oxidative pentosephosphate pathway in developing brassica napus embryos. J Biol Chem. 278 (32), 29442-29453 (2003).
Réimpressions et autorisations
