Nous avons étudié le tissu musculaire squelettique chez Bos indicus et les taureaux croisés pour expliquer les différences dans les traits de qualité de la viande. La force de cisaillement de Warner-Bratzler (WBSF) variait de 4,7 kg à 4,2 kg. Les isoformes de la chaîne lourde de la myosine ont révélé des différences entre les animaux, et l’indice de fragmentation des myofibrilles a fourni des informations supplémentaires sur les variations de tendreté (WBSF).
Article de méthode
Explorer le muscle longissimus : démêler sa corrélation avec la qualité de la viande chez les bos indicus et les taureaux croisés
Dans cet article
Résumé
Résumé
Cette étude a examiné le tissu musculaire chez les taureaux Bos indicus et croisés pour expliquer les différences dans les traits de qualité de la viande. Les caractéristiques de la carcasse, les paramètres de qualité de la viande et les études biochimiques et moléculaires des protéines myofibrillaires sont décrits. Les méthodes d’évaluation du pH, de la graisse intramusculaire (FMI), de la couleur de la viande (L*, a*, b*), des pertes d’eau, de la tendreté et des tests de biologie moléculaire ont été décrites. Des procédures spécifiques détaillant l’étalonnage, la préparation des échantillons et l’analyse des données pour chaque méthode sont décrites. Il s’agit notamment de techniques telles que la spectroscopie infrarouge pour le contenu en IMF, l’évaluation objective de la tendreté et la séparation électrophorétique des isoformes MyHC.
Les paramètres de couleur ont été mis en évidence comme des outils potentiels pour prédire la tendreté du bœuf, un trait de qualité crucial influençant les décisions des consommateurs. L’étude a utilisé la méthode de la force de cisaillement de Warner-Bratzler (WBSF), révélant des valeurs de 4,68 et 4,23 kg pour Nellore et Angus-Nellore (P < 0,01), respectivement. Les pertes totales à la cuisson et les analyses biochimiques, y compris l’indice de fragmentation des myofibrilles (MFI), ont permis de mieux comprendre les variations de tendreté. Les types de fibres musculaires, en particulier les isoformes de la chaîne lourde de myosine (MyHC), ont été étudiés, avec une absence notable de l’isoforme MyHC-IIb chez les animaux de zébus étudiés. La relation entre MyHC-I et la tendreté de la viande a révélé des résultats divergents dans la littérature, soulignant la complexité de cette association. Dans l’ensemble, l’étude fournit des informations complètes sur les facteurs influençant la qualité de la viande chez les taureaux Bos indicus et croisés (Bos taurus × Bos indicus), offrant ainsi des informations précieuses pour l’industrie du bœuf.
Introduction
Le Brésil possède le plus grand cheptel bovin commercial au monde, avec environ 220 millions d’animaux, et se classe au deuxième rang des producteurs de viande, avec plus de 9 millions de tonnes métriques d’équivalent carcasse paran1. Le secteur de la production bovine contribue de manière significative au système agricole national, avec des ventes annuelles totales dépassant 55 milliards de réaux. Depuis 2004, le Brésil est un acteur clé dans le commerce mondial de la viande, exportant vers plus de 180 pays, ce qui représente ~50% du commerce mondial de la viande2.
La tendreté de la viande est l’attribut de qualité primordial influençant la satisfaction des consommateurs et la consommation de viande3. En utilisant des méthodes biochimiques et objectives pour mesurer la tendreté de la viande, les chercheurs visent à fournir des informations précieuses sur des facteurs tels que la génétique animale, les techniques de transformation et les conditions d’entreposage, améliorant ainsi la qualité et l’uniformité des produits carnés pour les consommateurs. Ces informations sont utiles car la tendreté de la viande a pris de plus en plus d’importance dans la prise de décision des consommateurs lors de leurs achats. De plus, l’évaluation de la tendreté de la viande fournit des informations précieuses pour le contrôle de la qualité dans les industries de production et de transformation de la viande. En surveillant constamment la tendreté, les producteurs peuvent s’assurer que les produits de viande répondent aux normes et aux spécifications souhaitées. Dans ce contexte, les producteurs brésiliens de bovins de boucherie adoptent progressivement des systèmes d’engraissement intensifs avec des animaux croisés afin d’accroître la rotation des capitaux. Ce système représente environ 10% des tonnes de carcasses produites chaque année au Brésil 4,5.
La demande croissante des consommateurs pour une meilleure qualité de la viande a incité les producteurs de bovins de boucherie à se croiser avec des races européennes, principalement Aberdeen Angus6. Cette stratégie vise à produire des hybrides F1 Angus-Nellore, connus pour leurs performances supérieures, leurs caractéristiques de carcasse souhaitables et leur qualité de viande améliorée par rapport aux zébus purs 7,8. Dans les régions tropicales du Brésil, il est courant d’utiliser des animaux non castrés (taureaux) de maturité avancée dans les fermes de finition, ce qui peut compromettre les attributs de qualité de la viande tels que la couleur, le persillage et la tendreté. Notamment, une enquête révèle que 95 % des animaux finis dans les parcs d’engraissement brésiliens sont des mâles, dont 73 % sont des Nellore, suivis par 22 % d’animaux croisés et 5 % d’autres génotypes 9,10.
Comprendre les mécanismes biochimiques sous-jacents à la tendreté de la viande est crucial pour améliorer la qualité de la viande. Un aspect clé est la protéolyse post-mortem, qui affecte l’intégrité structurelle des fibres musculaires11. L’indice de fragmentation des myofibrilles (IMF) est un test biochimique largement utilisé qui quantifie l’étendue de la dégradation des myofibrilles, fournissant des informations sur la tendreté de la viande12. La méthode MFI consiste à mesurer la fragmentation des protéines myofibrillaires, qui est directement corrélée à la tendreté de la viande. Ce test complète les évaluations traditionnelles de la qualité de la viande et offre une compréhension plus approfondie des processus biochimiques qui contribuent aux variations de la tendreté de la viande.
Dans ce contexte, la présente étude a examiné le muscle squelettique des taureaux Bos indicus par rapport aux taureaux croisés (Bos taurus × Bos indicus) finis en parc d’engraissement, dans le but d’expliquer les différences dans les caractéristiques de qualité de la viande.
Protocole
Toutes les procédures avec des animaux ont été conformes aux normes éthiques de recherche établies par le Comité d’éthique de l’utilisation des animaux (CEUA) de l'"Universidade Estadual Paulista Júlio de Mesquita Filho » - UNESP Botucatu Campus, en vertu du protocole 0171/2018.
1. Animaux d’expérimentation
- Finir 30 taureaux Nellore (Bos indicus) et 30 taureaux F1 Angus-Nellore (Bos taurus × Bos indicus), âgés de 20 à 24 mois, dans un parc d’engraissement. Hébergez les deux groupes d’animaux dans des enclos collectifs de 5 m x 6 m avec un sol en béton et équipés d’abreuvoirs en forme de coquilles, pouvant accueillir jusqu’à cinq animaux par enclos. S’assurer que tous les animaux appartiennent au même groupe de gestion (nés et élevés sur la même ferme) et qu’ils sont soumis à la même période de parc d’engraissement.
REMARQUE : Dans cette étude, les taureaux Nellore avaient un poids corporel initial moyen de 370,7 kg, tandis que les taureaux F1 Angus-Nellore avaient un poids corporel initial moyen de 380,8 ± 17 kg. - Régime alimentaire du parc d’engraissement
- Assurez-vous que la ration de finition est composée de 11,3 % de fourrage grossier (foin Tifton et bagasse de canne à sucre) et de 88,7 % de concentrés (grains de maïs secs moulus, tourteau de soja, drêches de distillerie de maïs humides, aliments secs à base de gluten de maïs et noyau minéral). Nourrissez les animaux pendant 120 jours et donnez-leur un régime à volonté deux fois par jour (à 10h00 et à 16h00).
- Abattre
- Enregistrer le poids corporel final (BWf) à la fin de la période expérimentale. Traiter tous les animaux dans un abattoir à proximité, en respectant les procédures d’inspection standard. Avant l’abattage, assurez-vous que les animaux subissent un jeûne d’au moins 16 heures, en s’abstenant de nourriture et d’eau.
REMARQUE : Les taureaux F1 Angus-Nellore ont présenté un poids corporel final de 615,09 ± 57,53 kg, tandis que les taureaux Nellore avaient un poids de 545,47 ± 11,45 kg.
- Enregistrer le poids corporel final (BWf) à la fin de la période expérimentale. Traiter tous les animaux dans un abattoir à proximité, en respectant les procédures d’inspection standard. Avant l’abattage, assurez-vous que les animaux subissent un jeûne d’au moins 16 heures, en s’abstenant de nourriture et d’eau.
- Évaluation des caractéristiques de la carcasse
- Pesez d’abord les carcasses de bœuf, puis soumettez-les à une période de refroidissement de 2 à 4 °C pendant 48 h. Les mesures comprennent le poids chaud de la carcasse (HCW), la surface du faux-filet (REA) et l’épaisseur du gras dorsal (BFT) à l’interface des 12e et 13e côtes, comme recommandé13. Déterminez l’APER à l’aide de la méthode de la grille avec une petite grille (18 cm x 13 cm) et mesurez le BFT en millimètres à l’aide d’un pied à coulisse.
- Mesurez l’APER dans chaque carcasse à l’aide d’une grille réticulée (la même que celle utilisée dans le système de classification Yield Grade de l’USDA), divisée en carrés de 1 cm² avec un point au milieu. Additionnez tous les carrés à l’intérieur du périmètre du tracé du faux-filet et ceux le long du contour du tracé passant par le point du milieu.
- Mesurez le BFT à une position spécifique sur le site d’évaluation, n’importe où entre les 12et 13e côtes. Pour déterminer cette position, mesurez la longueur du faux-filet ; puis, en commençant par le bord médian « A », déterminez un point aux trois quarts le long du faux-filet et à mi-chemin sur « B ». Prenez un pied à coulisse à travers ce point et perpendiculairement à la côte spécifiée à l’interface entre la graisse sous-cutanée et la graisse intermusculaire. Mesurez la graisse sous-cutanée en plaçant l’étrier à angle droit par rapport à la ligne de la graisse sous-cutanée, à partir du point d’interface (figure supplémentaire S1).
- Pesez d’abord les carcasses de bœuf, puis soumettez-les à une période de refroidissement de 2 à 4 °C pendant 48 h. Les mesures comprennent le poids chaud de la carcasse (HCW), la surface du faux-filet (REA) et l’épaisseur du gras dorsal (BFT) à l’interface des 12e et 13e côtes, comme recommandé13. Déterminez l’APER à l’aide de la méthode de la grille avec une petite grille (18 cm x 13 cm) et mesurez le BFT en millimètres à l’aide d’un pied à coulisse.
- Échantillonnage
- Prélever un échantillon de Longissimus thoracis (LT) dans la demi-carcasse gauche (portion de ± 12,0 cm de viande), entre la 11e et la 13e côte dans la direction crânienne. En laboratoire, sectionnez les échantillons de viande en steaks de 2,54 cm.
- Vieillissement
- Évaluez les caractéristiques de qualité de la viande après une période de maturation humide de 14 jours à une température de 0 à 2 °C dans un incubateur de demande biologique en oxygène (DBO). Utilisez des biftecks de 2,54 cm d’épaisseur pour l’analyse de la couleur de la viande, du pH, de la graisse intramusculaire, de la perte par purge, de la capacité de rétention d’eau, de la tendreté objective et des pertes à la cuisson. Emballez les steaks séparément dans des sacs en plastique pour un vide poussé et une faible perméabilité à l’oxygène et, une fois le temps de maturation atteint, conservez-les congelés à -20 °C jusqu’au moment de l’analyse. Décongeler les échantillons de bœuf à 4 °C pendant 24 h et les exposer à l’oxygène pendant 30 min à 4 °C (temps de floraison).
2. pH de la viande
- Mesurez le pH de la viande à l’aide d’un pH-memètre numérique équipé d’une sonde de pénétration. Étalonnez-le avec des tampons de pH 4,0 et 7,0 à une température ambiante de 25 °C. Mesurez le pH de la viande à trois endroits de l’échantillon de muscle LT. Enregistrer manuellement les relevés de données et exporter ensuite la fiche technique ; calculer la moyenne des trois lectures pour le pH de la viande.
3. Graisse intramusculaire
REMARQUE : La teneur en graisse intramusculaire (IMF) a été déterminée à l’aide de la spectroscopie proche infrarouge (NIR)14 et de la méthode gravimétrique15.
- Retirez la graisse sous-cutanée du muscle LT à l’aide d’un scalpel. Ensuite, broyez et homogénéisez le steak pendant 5 min à l’aide d’un mélangeur, en incorporant environ 180 g de l’échantillon. Placez l’échantillon dans une coupelle, positionnez-le à l’intérieur de la chambre d’échantillon et effectuez un sous-balayage des différentes zones de l’échantillon d’essai en tournant la tasse d’échantillon ; Fusionnez les zones pour obtenir le résultat final.
- Prenez trois lectures pour chaque échantillon. Après homogénéisation, placez les échantillons dans la plaque pour une lecture ultérieure. Réglez l’appareil sur la transmission NIR, avec un monochromateur à réseau mobile balayant la région de 850 nm à 1050 nm.
- Exportez la feuille de données, puis calculez la moyenne des trois lectures pour l’IMF. Exprimez les résultats en pourcentage, à l’aide de la formule : [(IMF average ÷ sample weight) × 100].
- Combinez l’homogénéisation des échantillons de muscle LT (3,0 g) avec une solution de chloroforme/méthanol méthanol/chloroforme (2:1) pendant 2 min et soumettez-les à une centrifugation (700 × g ; 10 min ; 20 °C) pour séparer les phases hydrophile (supérieure), solide (moyenne) et hydrophobe (inférieure).
- Filtrer la phase hydrophobe obtenue après centrifugation à l’aide d’un papier filtre sur un entonnoir à légère aspiration. Transférez le filtrat (phase inférieure ; lipides dans le chloroforme) dans une fiole étiquetée comme phase lipidique et transférez au moins 5 mm de filtrat dans une fiole béchere prépesée après l’avoir laissé reposer pendant quelques minutes. Ensuite, notez le volume de la couche de chloroforme (au moins 150 mL) et aspirez la couche d’alcool.
- Homogénéiser 100 g d’aliquotes de l’échantillon de tissu frais ou congelé pendant 2 min avec un mélange de 100 mL de chloroforme et de 200 mL de méthanol. Ajouter 100 mL de chloroforme au mélange, mélanger pendant 30 s, ajouter 100 mL d’eau distillée et mélanger pendant 30 s supplémentaires.
- Filtrer l’homogénat à travers du papier filtre sur un entonnoir à légère aspiration. Appliquez une pression avec le fond d’un bécher lorsque le résidu devient sec pour assurer une récupération maximale du solvant.
- Transférez le filtrat dans une bouteille graduée de 500 mL et laissez-le reposer pendant quelques minutes pour permettre la séparation et la clarification. Enregistrer le volume de la couche de chloroforme (au moins 150 mL) et aspirer la couche d’alcool.
- Assurez-vous d’enlever complètement la couche supérieure ; La couche de chloroforme contient le lipide purifié. Pour l’extraction quantitative des lipides, récupérez les lipides piégés dans les résidus tissulaires en mélangeant le résidu et le papier filtre avec 100 mL de chloroforme.
- Filtrez le mélange à travers l’entonnoir et rincez le bol du mélangeur et les résidus avec un total de 50 ml de chloroforme. Mélangez ce filtrat avec le filtrat d’origine avant d’enlever la couche d’alcool.
REMARQUE : La filtration est généralement rapide ; Appliquer une pression avec le fond d’un bécher sur le résidu sec pour assurer une récupération maximale du solvant.
- Séchez les échantillons dans un four, refroidissez-les dans un dessiccateur pendant au moins 24 h, placez-les dans un four à 110 °C jusqu’à évaporation complète du solvant, refroidissez-les à nouveau dans un dessiccateur pendant la nuit, et enfin pesez-les à nouveau.
- Déterminez la teneur en IMF en calculant la différence entre le poids initial et le poids final du bécher.
4. Couleur de la viande
- Calibrez l’appareil à l’aide d’une plaque standard noire et d’une plaque standard blanche. Placez la plaque d’étalonnage blanche près du milieu de la plaque. Lors d’un calibrage, utilisez la zone près du milieu de la plaque. L’étalonnage est terminé après que la lampe ait allumé trois fois.
- Prenez les mesures après 30 min à 4 °C (temps de floraison). Obtenez des lectures de couleur à partir de trois endroits différents sur l’échantillon de muscle LT, en évitant soigneusement le tissu conjonctif et la graisse.
- À température ambiante (20 °C), calculez une moyenne à partir de ces mesures, comme recommandé16.
5. Pertes d’eau
- Évaluer la perte par purge (PL) pour tous les échantillons. Déterminer la PL des sections de longe de bœuf en mesurant l’écart entre le poids initial avant la congélation et le poids final après congélation/décongélation.
REMARQUE : N’évaluez pas la PL des longes de bœuf témoins jamais congelées. - Mesurer la capacité de rétention d’eau (WHC) en fonction de la différence de poids d’un échantillon de viande (environ 1,0 g) avant et après avoir été soumis à une pression de 10 kg pendant 5 min17.
6. Tendreté objective de la viande
REMARQUE : La mesure de la force de cisaillement de Warner-Bratzler (WBSF) a été effectuée comme décrit18,19.
- Placez les échantillons sur une grille fixée à un réfractaire en verre et faites-les cuire dans un four électrique industriel jusqu’à ce qu’ils atteignent une température finale de 71 °C. Après la cuisson, refroidir, peser et réfrigérer les échantillons à 4 °C pendant 24 h.
- Déterminez les pertes à la cuisson (CL) à l’aide de la formule
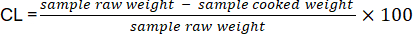 .
- Déterminez les pertes par égouttement en pesant le réfractaire avant et après la cuisson de l’échantillon. À cette fin, placez les échantillons sur une grille au-dessus d’un réfractaire en verre pour permettre l’évacuation des jus et des graisses de viande pendant la cuisson.
- Déterminez la perte par évaporation en pesant uniquement l’échantillon avant et après la cuisson.
- Enregistrez les poids crus et cuits et calculez le pourcentage de DL comme le poids de goutte après cuisson divisé par le poids de l’échantillon de viande décongelée.
- Calculez le pourcentage de perte par évaporation (EVP) à l’aide de la formule [100 - (poids après cuisson) ÷ poids brut × 100].
- Pour la détermination de la WBSF, sectionnez huit carottes d’un diamètre de 1,27 cm à l’aide d’un analyseur de texture, équipé d’une lame Warner-Bratzler Shear Force de 3,07 mm et d’un tranchant en forme de V (angle de 60°).
- Présenter les résultats sous la forme d’une moyenne de six valeurs par échantillon, en kilogrammes (kg), après exclusion des extrêmes bas et haut19.
7. Dosage biochimique
REMARQUE : La protéolyse post-mortem a été évaluée en estimant l’indice de fragmentation des myofibrilles (IMF), selon la procédure originale décrite par Culler et al.20 et adaptée pour les bovins Bos indicus par Borges et al.21.
- Homogénéiser des fragments d’environ 3 g d’échantillons LT (tissu musculaire et tissu conjonctif dégradés) dans une solution tampon contenant 100 mM de chlorure de potassium, 20 mM de phosphate de potassium à pH 7, 1 mM d’acide éthylènediaminetétraacétique (EDTA), 1 mM de chlorure de magnésium et 1 mM d’azoture de sodium à 2 °C, suivie d’une centrifugation (1 000 × g pendant 15 min à 4 °C).
- Remettre le sédiment en suspension dans 10 volumes (v/p) de milieu isolant à l’aide d’un agitateur, puis le sédimenter à nouveau à 1 000 × g pendant 15 min et décanter le surnageant.
- Remettre le sédiment en suspension dans 2,5 volumes (v/p) de milieu isolant et séparer le tissu conjonctif et les débris en le faisant passer dans une passoire en polyéthylène (18 mesh). Utilisez 2,5 volumes supplémentaires (v/w) pour permettre aux myofibrilles de passer à travers la passoire.
- Déterminer la concentration en protéines de la suspension de myofibrilles à l’aide de la méthode biuret de Gornall et al.22. Diluer une partie aliquote de la suspension de myofibrilles avec un milieu isolant jusqu’à une concentration protéique de 0,5 ± 0,05 mg/mL.
- Mesurez immédiatement l’absorbance de cette suspension à 540 nm. Déterminer MFI à l’aide de la spectrophotométrie à 540 nm. Multipliez l’absorbance par 200 pour obtenir l’IFM de chaque échantillon (et rapportez-le sous forme d’indice sans unité de mesure).
8. Essai de biologie moléculaire
REMARQUE : Pour l’analyse de la chaîne lourde de myosine (MyHC), la protéine la plus abondante dans le muscle squelettique bovin, les échantillons LT des deux groupes ont été traités selon le protocole décrit dans la littérature23,24.
- Réalisez la séparation électrophorétique à l’aide d’un gel SDS-PAGE dégradé (7-10%) et d’un gel d’empilage à 4%. Appliquez 25 μL de chaque échantillon dans le gel et faites-le fonctionner à 70 V, 28 mA et 4 °C pendant 1 h, suivi d’un cycle à 180 V, 12 mA et 4 °C pendant 29 h.
- Utilisez deux tampons différents dans les cycles : le tampon de gel supérieur comprenant de la glycine, une base de tris(hydroxyméthyl)aminométhane, du dodécylsulfate de sodium (SDS) et de l’eau distillée, tandis que le tampon de gel inférieur est identique au tampon supérieur, avec l’ajout de mercaptoéthanol.
- Teignez les gels avec du bleu Coomassie et capturez des images à l’aide d’un logiciel approprié.
- Identifier les isoformes de MyHC (MyHC-I, MyHC-IIa, MyHC-IIx/d) en fonction de leur poids moléculaire (223,900, 224,243 et 223,875 kDa, respectivement). Effectuer une analyse semi-quantitative par densitométrie des bandes correspondant à chaque isoforme, à l’aide d’un logiciel approprié.
- Utiliser le soléaire du rat et le muscle extenseur des doigts longs (EDL) comme témoins positifs pour classer les isoformes de MyHC, en réservant un puits dans chaque gel pour le chargement de 40 μL de l’échantillon traité.
- Pour toutes les données, effectuez l’analyse de variance (ANOVA) par le test F, à l’aide du modèle suivant :
Yij = μ + ti + Ɛij
où Yij est la valeur observée de l’unité expérimentale se rapportant au traitement i dans la répétition j ; μ’est l’effet général de la moyenne ; t est l’effet du traitement (groupe génétique) et ε est l’erreur expérimentale. - Comparez les moyennes en utilisant le test t de Student et adoptez la valeur P < 0,05 comme probabilité critique.
Résultats
Le tableau 1 présente les caractéristiques des carcasses des deux groupes génétiques étudiés dans cette étude. Notamment, des différences ont été identifiées (P < 0,01) chez les TS, les APER et les BFT, les animaux croisés présentant des valeurs plus élevées, suggérant un effet d’hétérosis.
| Variable¹ | Nellore | F1 Angus x Nellore | SEM | Valeur P |
| Finale BW, kg | 545,47b | 615.09A | 7.32 | <.0001 |
| HCW, kg | 286,87b | 325.12A | 3.26 | <.0001 |
| REA, cm² | 75,17b | 90,48A | 1.66 | <.0001 |
| BFT, mm | 5,72milliards | 9.16a | 0.62 | 0.001 |
Tableau 1 : Caractéristiques de la carcasse des taureaux Nellore (Bos indicus) et F1 (Bos taurus × Bos indicus) finis en parc d’engraissement. a-b Des lettres minuscules différentes indiquent des différences à P < 0,05. Abréviations : BW = poids corporel ; HCW = poids de la carcasse à chaud ; REA = surface du faux-filet ; BFT = épaisseur de la graisse dorsale ; SEM = erreur type de moyenne.
Des comparaisons des caractères de qualité de la viande ont également été effectuées (tableau 2) et aucune différence n’a été observée pour le pH de la viande, la rougeur, la PL, l’EVP et la CL (P > 0,05) entre les taureaux Nellore et les taureaux Angus-Nellore F1. Cependant, les taureaux croisés avaient plus d’IMF, de jaunissement, de WHC et de MFI que les taureaux Nellore (P < 0,05). Par conséquent, les caractéristiques de qualité de la viande des taureaux Nellore ont été affectées négativement en termes de tendreté, avec une plus grande WBSF et DL (viande plus dure), ainsi qu’une WHC plus faible et une humidité plus élevée.
| Variable¹ | Nellore | F1 Angus x Nellore | SEM | Valeur P |
| pH | 5.58 | 5.63 | 0.06 | 0.122 |
| Humidité, % | 74,51 a | 73,65 b | 0.21 | 0.017 |
| NIRS du FMI, en % | 3,79a | 5.11 b | 0.25 | 0.002 |
| Méthode gravimétrique IMF, % | 1,95 a | 3.11 b | 0.34 | 0.005 |
| Légèreté (L*) | 31,57 a | 30,98 b | 0.58 | 0.008 |
| Rougeur (a*) | 14.91 | 15.59 | 0.37 | 0.061 |
| Jaunissement (b*) | 5.61 a | 6.19 b | 0.17 | 0.003 |
| Perte par purge, % | 23.17 | 21.03 | 1.22 | 0.176 |
| Perte par goutte-à-goutte, % | 3,96 a | 3,67 b | 0.05 | 0.039 |
| Perte par évaporation, % | 22.9 | 24.22 | 1.15 | 0.122 |
| Perte totale de cuisson, % | 26.8 | 28.08 | 1.04 | 0.764 |
| CPE, % | 61.3 | 63.5 | 1.01 | 0.042 |
| WBSF, kg | 4,68 a | 4,23 b | 0.17 | 0.002 |
| L’IMF | 64,95 a | 81,76 b | 1.54 | 0.005 |
Tableau 2 : Caractéristiques de qualité de la viande du Nellore (Bos indicus) et de l’Angus-Nellore F1 (Bos taurus × Bos indicus) finis en parc d’engraissement. a-b Des lettres minuscules différentes indiquent des différences à P < 0,05. Abréviations : IMF = teneur en graisse intramusculaire ; WBSF = force de cisaillement Warner-Blatzler ; MFI = indice de fragmentation des myofibrilles ; WHC = capacité de rétention d’eau.
Les différences de tendreté de la viande peuvent également être associées à des différences de MyHC IIa (P < 0,01) entre les groupes expérimentaux (Figure 1). Les taureaux F1 Angus-Nellore présentaient une abondance plus élevée de MyHC IIa que les taureaux Nellore. Ces résultats suggèrent que, pour les animaux Nellore, une modulation s’est produite entre les fibres glycolytiques rapides (MyHC IIx) et les fibres glycolytiques à oxydation rapide (MyHC IIa). En revanche, pour les animaux F1 Angus-Nellore, cette modulation s’est produite avec moins d’ampleur, montrant une croissance hypertrophique notable des fibres glycolytiques rapides (MyHC IIx). Ainsi, l’expression des isoformes MyHC-IIa variait nettement entre ces groupes.
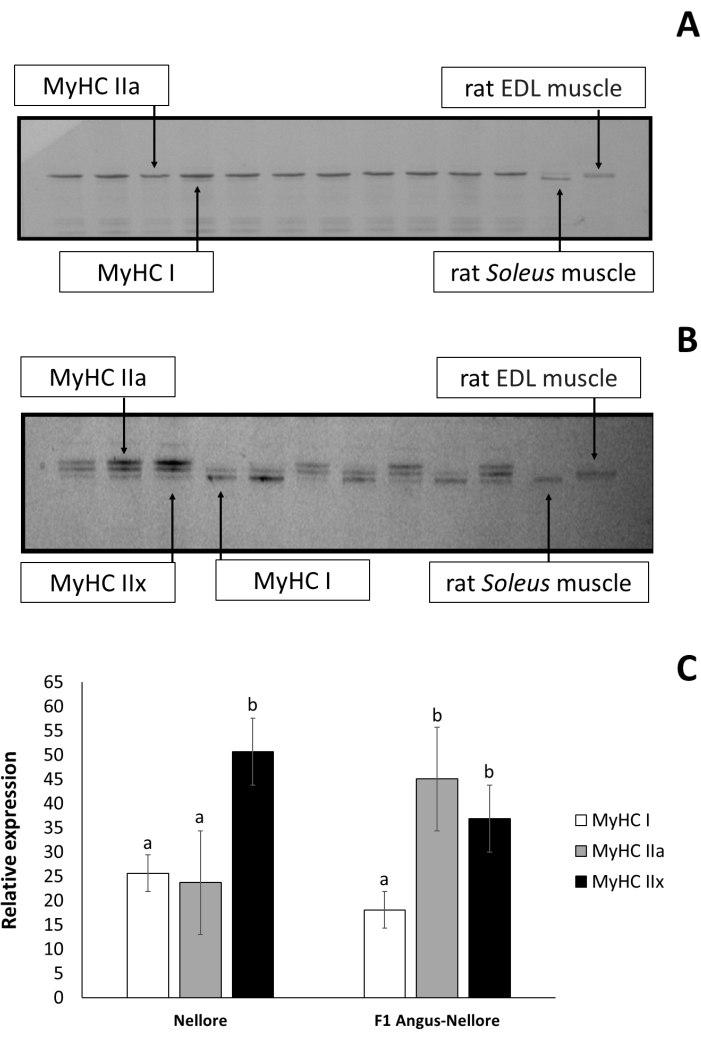
Figure 1 : Électrophorèse d’isoformes de la chaîne lourde de myosine du muscle Longissimus thoracis. (A) Taureaux Nellore et (B) Taureaux Angus-Nellore F1. (C) Pourcentage relatif d’isoformes de MyHC dans le muscle Longissimus thoracis de deux groupes expérimentaux (gel SDS-PAGE 7-10%). Abréviations : MyHC = chaîne lourde de myosine ; SDS-PAGE = électrophorèse sur gel de dodécylsulfate-polyacrylamide de sodium. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Figure supplémentaire S1 : Méthode de mesure de l’épaisseur de la graisse dorsale (BFT) à l’interface entre la graisse sous-cutanée et la graisse intermusculaire. Le processus consiste à identifier des points de repère anatomiques spécifiques, y compris le bord médial « A » et un point situé aux trois quarts le long du faux-filet et à mi-chemin de « B ». Un pied à coulisse est ensuite positionné perpendiculairement à la côte spécifiée au point B, s’étendant jusqu’à l’interface entre la graisse sous-cutanée et la graisse intermusculaire. L’épaisseur de la graisse sous-cutanée est mesurée en plaçant l’étrier à angle droit par rapport à la ligne de graisse sous-cutanée à partir du point d’interface. Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Lors de l’évaluation de la carcasse, il est essentiel de mesurer avec précision la croissance et les caractéristiques de qualité après une période de refroidissement de 48 heures afin d’obtenir des données cohérentes et comparables. Les deux modèles biologiques présentaient des caractéristiques divergentes des carcasses, en particulier des TS, des APER et des BFT, qui sont conformes aux résultats rapportés dans d’autres études. Le poids moyen des taureaux Nellore correspond aux préférences du marché brésilien, qui privilégie une plus grande production de viande par unité animale avec une teneur en graisse inférieure25. À l’inverse, les bovins croisés (Bos taurus × Bos indicus) ont des poids de carcasse plus élevés et des scores de persillage plus élevés, ce qui donne une viande de qualité sensorielle supérieure. Cela répond à la demande du marché pour une viande bovine à forte valeur ajoutée, car ces attributs sont associés aux produits carnés de qualité supérieure26.
Les valeurs moyennes de pH obtenues, variant entre 5,3 et 5,5, correspondent étroitement aux valeurs publiées dans la littérature pour le bœuf27, qui varient généralement de 5,3 à 5,6. Les variables de couleur L*, a*, b* sont cohérentes avec les valeurs moyennes pour les bovins de boucherie observées dans d’autres études 7,28. Ces études ont rapporté des variables b*, a* et L* allant de 4,0 à 7,0, de 13 à 16 et de 30,0 à 32,0, respectivement. Dans ces tests de qualité de la viande, la préparation des échantillons doit être méticuleuse, impliquant la manipulation appropriée des échantillons musculaires, y compris un processus de vieillissement normalisé et un temps de floraison avant l’analyse, afin d’assurer l’uniformité. Les protocoles d’étalonnage et de mesure exigent que tous les appareils, tels que les pH-mètres et les colorimètres, soient étalonnés avec précision avant d’être utilisés afin de maintenir l’intégrité des mesures.
La couleur de la viande résulte de l’interaction de l’oxygène avec la myoglobine dans les muscles, et la concentration de myoglobine semble être proportionnelle à la taille de l’animal29. Des résultats similaires ont été rapportés par Purchas et al.30 pour les animaux européens (Bos taurus), où ils ont observé une rougeur et un jaunissement plus élevés dans la viande des bovins Angus à croissance rapide par rapport aux animaux à croissance lente. Des études antérieures ont rapporté l’utilité potentielle des paramètres de couleur (L*, a*, b*) comme outil de prédiction de la tendreté du bœuf chez les animaux européens31 et les zébus32.
L’examen de la couleur de la viande est essentiel, car elle figure parmi les principaux facteurs pris en compte par les consommateurs lors de l’achat de viande, aux côtés de la sécurité alimentaire (origine et commerce du produit), du type et de la taille de la coupe, ainsi que du gras et de la graisse intramusculaire (persillage). Par conséquent, afin d’accroître la probabilité que la viande soit tendre et juteuse, il est conseillé aux consommateurs d’évaluer la couleur de la viande, la taille de la coupe et, notamment, le persillage ou la graisse intramusculaire et sous-cutanée33. Néanmoins, il est évident que la couleur exerce l’influence la plus significative sur la prise de décision lors de l’achat de viande.
La valeur moyenne de la WBSF obtenue se situait dans la fourchette de 4,0 à 4,7 kg. L’analyse objective de la tendreté a été largement utilisée pour évaluer la tendreté de la viande, car elle est considérée comme relativement rentable et ne nécessite pas de panélistes ou de tests sensoriels34. Étant donné la nature subjective des évaluations des consommateurs sur la tendreté de la viande de bœuf, qui est influencée par l’IMF35, les méthodes instrumentales sont cruciales pour prédire les indices de tendreté. De plus, la sensibilité de certaines méthodes, telles que la spectroscopie dans le proche infrarouge, nécessite un étalonnage précis et une préparation cohérente des échantillons. Tout écart peut entraîner des lectures inexactes.
Le concept original de l’instrument WBSF a subi quelques modifications depuis les années 6036. Dans le contexte du bœuf, cette méthode a été normalisée par Wheeler et al.37. Selon les auteurs, la préparation et la cuisson des échantillons doivent être méticuleusement contrôlées : les échantillons sont positionnés sur une grille au-dessus d’un réfractaire en verre et cuits jusqu’à ce qu’ils atteignent une température interne de 71 °C. Après la cuisson, les échantillons sont refroidis, pesés et réfrigérés à 4 °C pendant 24 h afin de les stabiliser avant une analyse plus approfondie. Les pertes de cuisson sont calculées à l’aide de formules pour les pertes par goutte à goutte et les pertes par évaporation, ce qui garantit que les changements de poids dus à la cuisson sont quantifiés avec précision. La mesure WBSF est une étape cruciale, impliquant la section de huit carottes par échantillon, la moyenne de six valeurs de force de cisaillement étant rapportée après exclusion des extrêmes, fournissant une mesure fiable de la tendreté de la viande. Dans la présente étude, les pertes totales à la cuisson, qui représentent la somme des EL et des DL, étaient comparables à celles déclarées chez les bovins de boucherie finis en parc d’engraissement38. De plus, il est largement admis que les changements induits par la chaleur dans le tissu conjonctif contribuent à un effet attendrissant. Des études ont démontré l’impact de la température de fin de cuisson sur la tendreté, révélant des modifications de la structure myofibrillaire, où la tendreté et la CL sont affectées par la dénaturation des protéines39,40. De tels événements chimiques ou moléculaires peuvent influencer les propriétés sensorielles en raison d’altérations du WHC.
Les résultats observés concernant la CL et le WHC s’alignent sur les attentes, car il est bien établi que la distribution et la disponibilité de l’eau dans les muscles jouent un rôle central dans la jutosité, la tendreté et la saveur41. Par conséquent, une DL plus élevée et une WHC plus faible conduisent à une viande plus dure et moins juteuse, comme observé dans cette étude pour les taureaux Nellore.
Les analyses biochimiques telles que l’IMF sont utilisées comme indicateur de la tendreté de la viande. Les résultats obtenus dans la présente étude confirment que l’IMF dans le bœuf diminue à mesure que la valeur WBSF augmente, ce qui pourrait indiquer une réduction de la fragmentation myofibrillaire dans les viandes plus dures. Ainsi, l’IFM sert d’indicateur de la protéolyse des fibres musculaires, augmentant avec la diminution de WBSF42. Les chercheurs ont rapporté qu’un taux plus élevé de protéolyse myofibrillaire entraînait une augmentation de la tendreté chez le bœuf43 et l’agneau44. Ce test biochimique pour la protéolyse post-mortem implique l’homogénéisation des échantillons LT dans une solution tampon spécifique, suivie d’une centrifugation et d’une remise en suspension, la concentration en protéines étant déterminée à l’aide de la méthode du biuret. L’IFM est ensuite mesurée par spectrophotométrie, ce qui permet d’obtenir un indice qui reflète le degré de fragmentation myofibrillaire. Ces étapes méticuleusement contrôlées garantissent l’intégrité et la fiabilité des données, cruciales pour évaluer la qualité et la valeur marchande des produits carnés.
De plus, l’IMF peut expliquer plus de 50% de la variation de tendreté de la viande vieillie. Lorsque l’on étudie différentes races ou groupes, les variations de tendreté de la viande ne dépendent pas uniquement de facteurs génétiques. En particulier pour le muscle LT, comme indiqué dans cette recherche, la variation de sensibilité est principalement attribuée à la protéolyse des protéines myofibrillaires et, dans une moindre mesure, à la longueur du sarcomère et au contenu du tissu conjonctif45. Néanmoins, la relation entre la WBSF et l’IMF peut servir d’outil précieux pour détecter les problèmes de tendreté de la viande causés par les processus de stockage frigorifique post-mortem dans l’industrie de la viande. Il est important de noter que si notre étude donne un aperçu des différences entre les types de race, elle ne constitue pas une évaluation génétique complète en raison de la taille de l’échantillon et de la portée de notre recherche.
L’analyse moléculaire nécessite un contrôle rigoureux des conditions d’électrophorèse et une analyse ultérieure des isoformes de MyHC pour garantir la fiabilité de la séparation et de l’identification des protéines. Le respect de ces étapes critiques garantit la robustesse et la reproductibilité des résultats de l’étude. Le type de fibre musculaire joue un rôle fondamental dans la modulation de la croissance et des traits de tendreté du bœuf. Les protéines MyHC sont les protéines les plus abondantes dans le muscle bovin46 et sont couramment étudiées pour la reconnaissance moléculaire des types de fibres dans chaque muscle. Certaines isoformes de MyHC, telles que MyHC-IIx, ont été suggérées comme biomarqueurs de la tendreté de la viande chez Bos taurus47. Cependant, peu d’études ont évalué les gènes codant pour MyHC et quantifié leurs isoformes chez les zébus (Bos indicus). L’absence de l’isoforme MyHC-IIb chez les animaux étudiés s’aligne sur les résultats rapportés dans les études sur l’identification et l’expression de MyHC dans le muscle squelettique des bovins adultes48. Plus précisément, chez les bovins Nellore, des études antérieures n’ont pas pu détecter la présence de l’isoforme MyHC-IIb par électrophorèse dans le muscle LT. Cette isoforme est plus fréquente chez les races Bos taurus à double muscle, comme la Blonde d’Aquitaine49.
La relation entre le type de fibre musculaire et la tendreté du bœuf a fait l’objet d’un débat permanent. La variabilité de l’échantillon est un facteur important, car les différences de composition musculaire et de types de fibres entre les animaux peuvent conduire à des résultats incohérents. Les facteurs environnementaux, y compris le régime alimentaire et les conditions de manipulation, jouent également un rôle crucial dans l’influence des caractéristiques de qualité de la viande. Ces limites soulignent la nécessité d’un contrôle et d’une normalisation rigoureux tout au long du processus de mesure pour garantir des résultats fiables et comparables. À l’instar des résultats de la présente étude, un effet négatif de MyHC-I sur la sensibilité du muscle LT a été signalé chez les bovins charolais 50,51. En revanche, d’autres études ont décrit un effet positif de MyHC-I sur la tendreté de la viande chez diverses races, notamment l’Aubrac, le Salers, le Limousin, le Charolais, le Montbéliard, le Holstein et la Blonde d’Aquitaine 52,53,54. Les résultats divergents trouvés dans la littérature pourraient être attribués aux différences de génotype et aux limites des méthodes utilisées pour la séparation et l’identification de cette isoforme dans le muscle LT bovin. En outre, des environnements et des régimes alimentaires différents pourraient également avoir un impact sur la qualité de la viande et les traits musculaires.
Les analyses biochimiques, en particulier l’IMF, ont mis en lumière les mécanismes de tendreté du bœuf post-mortem, montrant le rôle clé des types de fibres musculaires, des isoformes de la chaîne lourde de la myosine et de leurs impacts sur la tendreté du bœuf. L’absence de certaines isoformes de MyHC chez les bovins Bos indicus est notée, ce qui a des implications pour la variation de la tendreté du bœuf. Dans l’ensemble, l’interaction complexe des facteurs génétiques et biochimiques régule la tendreté du bœuf et souligne la nécessité de poursuivre les recherches dans ce domaine. L’intégration de plusieurs méthodes telles que la mesure WBSF, l’analyse du contenu IMF et l’électrophorèse isoforme MyHC permet d’expliquer les variations de la qualité de la viande. Les protocoles détaillés décrits offrent des étapes précises pour évaluer la qualité de la viande, en veillant à ce que les procédures puissent être reproduites avec précision ou adaptées par d’autres chercheurs. De plus, les résultats offrent des informations génétiques précieuses en mettant en évidence des différences significatives dans les traits de qualité de la viande entre Bos indicus et les taureaux croisés.
Déclarations de divulgation
Les auteurs n’ont rien à divulguer. Les bailleurs de fonds n’ont joué aucun rôle dans la conception de l’étude, la collecte et l’analyse des données, la décision de publier ou la préparation du manuscrit.
Remerciements
Cette recherche a été financée par la FAPESP (subventions 2023/05002-3 ; 2023/02662-2 et 2024/09871-9), CAPES (code financier 001), CNPq (304158/2022-4), et par PROPE (subvention IEPe-RC numéro 149) de l’École de médecine vétérinaire et de sciences animales de l’Université d’État de São Paulo.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Acétone | Merk, Darmstadt, Allemagne | CAS 67-64-1 | 100014 | solutions utilisées pour les séparations électrophorétiques |
| Anticorps anti-MYH-1 Merk | , Darmstadt, Allemagne | MABT846 | Soléaire de rat |
| Anticorps anti-myosine | Abcam, Massachusetts, États-Unis | ab37484 | Myosine à chaîne lourde |
| Anticorps anti-myosine-2 (MYH2) | Merk, Darmstadt, Allemagne | MABT840 | Extensor digitorum longus (EDL) |
| Incubateur de demande biologique en oxygène (DBO) | TECNAL, Sã ; o Paulo, Brésil | TE-371/240L | Vieillissement de la viande |
| Chloroforme ; réactif analytique absolu | Sigma-Aldrich, Missouri, | États-Unis 67-66-3 | Graisse intramusculaire |
| Système CIELab | Konica Minolta Sensing, Tokyo, Japon | Colorimètre CR-400 | Couleur de la viande |
| Coomassie Blue Sigma-Aldrich | , Missouri, États-Unis | C.I. 42655) | Chaîne lourde de myosine |
| Électrique four | Venâ ; ncio Aires, Rio Grande do Sul, Brésil | Tendreté de la viande | |
| Éthanol | Merk, Darmstadt, Allemagne | 64-17-5 | solutions utilisées pour les séparations électrophorétiques |
| Acide éthylènediaminetétraacétique | Sigma-Aldrich, Missouri, États-Unis | 60-00-4 | Protéolyse post-mortem |
| Fioles en verre | Sigma-Aldrich, Missouri, États-Unis | Solutions utilisées pour la séparations électrophorétiques | |
| Glycine | Sigma-Aldrich, Missouri, États-Unis | G6761 | Spectroscopie infrarouge à chaîne lourde de myosine |
| - FoodScan | Foss NIRSystems, Madson, États-Unis | FoodScan&trade ; 2 | Graisse intramusculaire |
| Chlorure de magnésium | Sigma-Aldrich, Missouri, États-Unis | ; 7786-30-3 | Protéolyse post-mortem |
| Mercaptoetanol | Sigma-Aldrich, Missouri, États-Unis | M6250 | Myosine à chaîne lourde |
| Méthanol, réactif analytique absolu | Sigma-Aldrich, Missouri, États-Unis | 67-56-1 | PH-mètre de graisse intramusculaire |
| LineLab, Sã ; o Paulo, Brésil | AKLA 71980 | pH de la viande | |
| PlusOne 2-D Quant Kit | GE Healthcare Code produit | 80-6483-56 | Protéolyse post-mortem |
| Polypropylène | Sigma-Aldrich, Missouri, États-Unis | Solutions utilisées pour les séparations électrophorétiques | |
| Chlorure de potassium | Sigma-Aldrich, Missouri, États-Unis | 7447-40-7 | Protéolyse |
| post-mortemPhosphate de potassium | Sigma-Aldrich, Missouri, États-Unis | P0662 | Protéolyse post-mortem |
| R logiciel | Vienne, Autriche | version 3.6.2 | Analyse des données |
| Azoture de sodium | Sigma-Aldrich, Missouri, États-Unis | 26628-22-8 | Protéolyse post-mortem |
| Dodécylsulfate de sodium ;( SDS) | Sigma-Aldrich, Missouri, États-Unis | 822050 | Spectrophotomètre à chaîne lourde de myosine |
| Perkin Elmer, Shelton, États-Unis | Perkin Elmer Lambda 25 UV/Vis | Protéolyse post-mortem | |
| Système d’analyse statistique | SAS, Cary, Caroline du Nord, États-Unis | version 9.1,Analyse | de données |
| Analyseur de texture | AMETEK Brookfield, Massachusetts, États-Unis States | CTX | Tendreté de la viande |
| Tris(hydroxyméthyl)aminométhane | Sigma-Aldrich, Missouri, États-Unis | 77-86-1 | Myosine à chaîne lourde |
| Ultrafreezer Indrel Scientific, Londrina, Paranácute ;, Brésil. | INDREL IULT 335 D - LCD | Stockage d’échantillons | |
| Eau ultrapure | Elga PURELAB Solutions système Ultra Ionic | utilisées pour les séparations électrophorétiques | |
| Mélangeur à haut cisaillement Ultra-Turrax | Marconi &ndash ; MA102/E, Piracicaba, Sã ; o Paulo, Brésil | Protéolyse post-mortem |
Références
- Nunes, C. L. deC., Pflanzer, S. B., Rezende-de-Souza, J. H., Chizzotti, M. L. Beef production and carcass evaluation in Brazil. Anim Front. 14 (2), 15-20 (2024).
- MAPA. Projeções Do Agronegócio: Brasil 2017/18 a 2027/28 Projeções de Longo Prazo / Ministério Da Agricultura, Pecuária e Abastecimento. Biblioteca Nacional de Agricultura. , BINAGRI. Brasília-DF. (2018).
- Bernués, A., Ripoll, G., Panea, B. Consumer segmentation based on convenience orientation and attitudes towards quality attributes of lamb meat. Food Qual Prefer. 26, 211-220 (2012).
- Andrade, T. S., et al. Perception of consultants, feedlot owners, and packers regarding management and marketing decisions on feedlots: A national survey in Brazil (Part II). Can J Anim Sci. 100 (4), 759-770 (2020).
- de Andrade, T. S., et al. Perception of consultants, feedlot owners, and packers regarding the optimal economic slaughter endpoint in feedlots: A national survey in Brazil (Part I). Can J Anim Sci. 100 (4), 745-758 (2020).
- Santiago, B., et al. Comparison of dental carcass maturity in non-castrated male F1 Angus-Nellore cattle finished in feedlot. Food Sci Anim Resour. 41 (3), 554-562 (2021).
- Miguel, G. Z., et al. Immunocastration improves carcass traits and beef color attributes in Nellore and Nellore×Aberdeen Angus crossbred animals finished in feedlot. Meat Sci. 96 (2), 884-891 (2014).
- Costa, N. V., et al. Carcass and meat quality traits in Nellore and F1 Nellore-Araguaia crosses. Genet Mol Res. 14 (2), 5379-5389 (2015).
- Pinto, A. C. J., Millen, D. D. Nutritional recommendations and management practices adopted by feedlot cattle nutritionists: the 2016 Brazilian survey. Can J Anim Sci. 99 (2), 392-407 (2019).
- Costa Junior, C., et al. Brazilian beef cattle feedlot manure management: A country survey. J Anim Sci. 91 (4), 1811-1818 (2013).
- Huang, C., et al. Proteomics discovery of protein biomarkers linked to meat quality traits in post-mortem muscles: Current trends and future prospects: A review. Trends Food Sci Technol. 105, 416-432 (2020).
- Muniz, M. M. M., et al. Use of gene expression profile to identify potentially relevant transcripts to myofibrillar fragmentation index trait. Funct Integr Genomics. 20, 609-619 (2020).
- Official United States Standards for Grades of Carcass Beef. United States Standards for Grades of Carcass Beef. USDA. , Available from: https://www.ams.usda.gov/sites/default/files/media/CarcassBeefStandard.pdf 1-20 (1997).
- Anderson, S. Determination of fat, moisture, and protein in meat and meat products by using the FOSS FoodScan near-infrared spectrophotometer with FOSS artificial neural network calibration model and associated database: Collaborative study. J AOAC Int. 90 (4), 1073-1083 (2007).
- Bligh, E. G., Dyer, W. J. A rapid method of total lipid extraction. Can J Biochem Physiol. 37 (8), 911-917 (1959).
- Hernández Salueña, B., Sáenz Gamasa, C., Diñeiro Rubial, J. M., Alberdi Odriozola, C. CIELAB color paths during meat shelf life. Meat Sci. 157, 107889(2019).
- Rao, M. V., Gault, N. F. S., Kennedy, S. Variations in water-holding capacity due to changes in the fibre diameter, sarcomere length and connective tissue morphology of some beef muscles under acidic conditions below the ultimate pH. Meat Sci. 26 (1), 19-37 (1989).
- Wheeler, T. L., Koohmaraie, M., Cundiff, L. V., Dikeman, M. E. Effects of cooking and shearing methodology on variation in Warner-Bratzler shear force values in beef. J Anim Sci. 72 (9), 2325-2330 (1994).
- AMSA. Research Guidelines for Cookery, Sensory Evaluation, and Instrumental Tenderness Measurements of Meat. American Meat Science Association Educational Foundation. , (2015).
- Culler, R. D., Parrish, F. C., Smith, G. C., Cross, H. R. Relationship of myofibril fragmentation index to certain chemical, physical and sensory characteristics of bovine longissimus muscle. J Food Sci. 43 (4), 1177-1180 (1978).
- Borges, B. O., et al. Polymorphisms in candidate genes and their association with carcass traits and meat quality in Nellore cattle. Pesqui Agropecu Bras. 49 (5), 364-371 (2014).
- Gornall, A. G., Bardawill, C. J., David, M. M. Determination of serum proteins by means of the biuret reaction. J Biol Chem. 177 (2), 751-766 (1949).
- Chardulo, L. A. L., et al. Gene and protein expression of myosin heavy chain in Nellore cattle comparing growth or meat tenderness traits. Anim Biotechnol. 32 (3), 300-309 (2019).
- Vechetti-Júnior, I. J., et al. NFAT isoforms regulate muscle fiber type transition without altering can during aerobic training. Int J Sports Med. 34 (10), 861-867 (2013).
- Ferraz, J. B. S., de Felício, P. E. Production systems - An example from Brazil. Meat Sci. 84, 238-243 (2010).
- Liang, R. R., et al. Tenderness and sensory attributes of the longissimus lumborum muscles with different quality grades from Chinese fattened yellow crossbred steers. Meat Sci. 112, 52-57 (2016).
- Viljoen, H. F., De Kock, H. L., Webb, E. C. Consumer acceptability of dark, firm and dry (DFD) and normal pH beef steaks. Meat Sci. 61 (2), 181-185 (2002).
- Lopes, L. S. F., et al. Application of the principal component analysis , cluster analysis , and partial least square regression on crossbreed Angus-Nellore bulls feedlot finished. Trop Anim Health Prod. 52 (6), 3655-3664 (2020).
- Oddy, V. H., Harper, G. S., Greenwood, P. L., McDonagh, M. B. Nutritional and developmental effects on the intrinsic properties of muscles as they relate to the eating quality of beef. Aust J Exp Agric. 41 (7), 921-942 (2001).
- Purchas, R. W., Burnham, D. L., Morris, S. T. Effects of growth potential and growth path on tenderness of beef longissimus muscle from bulls and steers. J Anim Sci. 80 (12), 3211-3221 (2002).
- Wulf, D. M., O’Connor, S. F., Tatum, J. D., Smith, G. C. Using objective measures of muscle color to predict beef Longissimus tenderness. J Anim Sci. 75 (3), 684-692 (1997).
- Baldassini, W. A., et al. Meat quality traits of Nellore bulls according to different degrees of backfat thickness: A multivariate approach. Anim Prod Sci. 57 (2), 363-370 (2017).
- Chardulo, L. A. L., Silveira, A. C., Vianello, F. Analytical aspects for tropical meat quality assessment. Food Quality, Safety and Technology. Lima, G. P. P., Vianello, F. , Springer-Verlag Wien. 53-62 (2013).
- Chen, L., Opara, U. L. Texture measurement approaches in fresh and processed foods - A review. Food Research International. 51 (2), 823-835 (2013).
- Luo, L., Guo, D., Zhou, G., Chen, K. An investigation on the relationship among marbling features, physiological age and Warner–Bratzler Shear force of steer longissimus dorsi muscle. J Food Sci Technol. 55 (4), 1569-1574 (2018).
- Essex, E. Objective measurements for texture in foods. J Texture Stud. 1, 19-37 (1969).
- Wheeler, T. L., Koohmaraie, M., Shackelford, S. D. Standardized Warner-Bratzler shear force procedures for meat tenderness measurement. , Available from: https://www.ars.usda.gov/ARSUserFiles/30400510/protocols/shearforceprocedures.pdf (1995).
- Severino, M., et al. Proteomics unveils post-mortem changes in beef muscle proteins and provides insight into variations in meat quality traits of crossbred young steers and heifers raised in feedlot. Int J Mol Sci. 23 (20), 12259(2022).
- Bertola, N. C., Bevilacqua, A. E., Zaritsky, N. E. Heat treatment effect on texture changes and thermal denaturation of proteins in beef muscle. J Food Process Preserv. 18 (1), 31-46 (1994).
- Palka, K., Daun, H. Changes in texture, cooking losses, and myofibrillar structure of bovine M. semitendinosus during heating. Meat Sci. 51 (3), 237-243 (1999).
- Pearce, K. L., Rosenvold, K., Andersen, H. J., Hopkins, D. L. Water distribution and mobility in meat during the conversion of muscle to meat and ageing and the impacts on fresh meat quality attributes - A review. Meat Sci. 89 (2), 111-124 (2011).
- Muniz, M. M. M., et al. Use of gene expression profile to identify potentially relevant transcripts to myofibrillar fragmentation index trait. Funct Integr Genomics. 20 (4), 609-619 (2020).
- Baldassini, W., et al. Meat quality and muscle tissue proteome of crossbred bulls finished under feedlot using wet distiller grains by-product. Foods. 11 (20), 3233(2022).
- della Malva, A., et al. In-depth characterization of myofibrillar muscle proteome changes in lambs fed hazelnut skin by-products. Food Biosci. 53, 102836(2023).
- Koohmaraie, M., Kent, M. P., Shackelford, S. D., Veiseth, E., Wheeler, T. L. Meat tenderness and muscle growth: Is there any relationship. Meat Sci. 62 (3), 345-352 (2002).
- Lefaucheur, L., et al. Muscle characteristics and meat quality traits are affected by divergent selection on residual feed intake in pigs. J Anim Sci. 89 (4), 996-1010 (2011).
- Picard, B., et al. Inverse relationships between biomarkers and beef tenderness according to contractile and metabolic properties of the muscle. J Agric Food Chem. 62 (40), 9808-9818 (2014).
- Chikuni, K., Muroya, S., Nakajima, I. Myosin heavy chain isoforms expressed in bovine skeletal muscles. Meat Sci. 67 (1), 87-94 (2004).
- Picard, B., Cassar-Malek, I. Evidence for expression of IIb myosin heavy chain isoform in some skeletal muscles of Blonde d’Aquitaine bulls. Meat Sci. 82 (1), 30-36 (2009).
- Crouse, J. D., Koohmaraie, M., Seideman, S. D. The relationship of muscle fibre size to tenderness of beef. Meat Sci. 30 (4), 295-302 (1991).
- Zamora, F., et al. Predicting variability of ageing and toughness in beef M. Longissimus lumborum et thoracis. Meat Sci. 43 (3-4), 321-333 (1996).
- Strydom, P. E., Naude, R. T., Smith, M. F., Scholtz, M. M., Van Wyk, J. B. Characterisation of indigenous African cattle breeds in relation to meat quality traits. Meat Sci. 55 (1), 79-88 (2000).
- Renand, G., Picard, B., Touraille, C., Berge, P., Lepetit, J. Relationships between muscle characteristics and meat quality traits of young Charolais bulls. Meat Sci. 59 (1), 49-60 (2001).
- Chriki, S., et al. Meta-analysis of the comparison of the metabolic and contractile characteristics of two bovine muscles: Longissimus thoracis and semitendinosus. Meat Sci. 91 (4), 423-429 (2012).
Réimpressions et autorisations
