Ici, une méthode de chromatographie liquide à haute performance en phase normale est décrite pour détecter et quantifier les rétinoïdes critiques impliqués dans la facilitation de la fonction visuelle dans les tissus oculaires et systémiques, dans le contexte de l’apport systémique en vitamine A pour générer le chromophore 11-cis-rétinal photosensible essentiel de la rhodopsine.
Article de méthode
Analyse quantitative des métabolites alimentaires de la vitamine A dans les tissus oculaires et non oculaires murins à l’aide de la chromatographie liquide à haute performance
Dans cet article
Résumé
Résumé
Les récepteurs couplés aux protéines G (RCPG) sont une superfamille de protéines transmembranaires qui initient des cascades de signalisation par l’activation de sa protéine G lors de l’association avec son ligand. Dans toutes les visions de mammifères, la rhodopsine est le RCPG responsable de l’initiation de la cascade de phototransduction. Dans les photorécepteurs, la rhodopsine est liée à son chromophore 11-cis-rétinal et est activée par l’isomérisation sensible à la lumière du 11-cis-rétinal en tout-trans-rétinien, ce qui active la protéine transducine G, entraînant la cascade de phototransduction.
Bien que la phototransduction soit bien comprise, les processus impliqués dans l’approvisionnement en précurseurs alimentaires de la vitamine A pour la génération de 11-cis-rétinienne dans l’œil, ainsi que les maladies entraînant une perturbation de cet approvisionnement, ne sont pas encore entièrement compris. Une fois que les précurseurs de la vitamine A sont absorbés dans l’intestin, ils sont stockés dans le foie sous forme d’esters de rétinyle et libérés dans la circulation sanguine sous forme de rétinol tout trans lié à la protéine de liaison au rétinol 4 (RBP4). Ce RBP4-rétinol circulatoire sera absorbé par les organes systémiques, tels que le foie, les poumons, les reins et les yeux. Par conséquent, une méthode de quantification des différents métabolites de la vitamine A alimentaire dans l’œil et les organes systémiques est essentielle à l’étude de la fonction correcte de la rhodopsine GPCR.
Dans cette méthode, nous présentons une méthode complète d’extraction et d’analyse pour l’analyse de la vitamine A dans le tissu murin. Grâce à l’analyse par chromatographie liquide haute performance en phase normale, tous les isomères pertinents des rétinaldéhydes, des rétinols et des esters de rétinyle peuvent être détectés simultanément en une seule analyse, ce qui permet une utilisation efficace des échantillons expérimentaux et augmente la fiabilité interne des différents métabolites de la vitamine A au sein d’un même échantillon. Grâce à cette méthode complète, les chercheurs seront en mesure de mieux évaluer l’apport systémique en vitamine A dans la fonction des RCPG de la rhodopsine.
Introduction
Les récepteurs couplés aux protéines G (RCPG) sont l’une des superfamilles de protéines les plus étudiées et les plus caractérisées connues. Dans sa fonction la plus connue, les RCPG servent de récepteur de surface cellulaire dans la transduction du signal, initialisant les réponses intracellulaires lors de la liaison avec un ligand spécifique. Les RCPG sont caractérisés par sept domaines hélicoïdaux transmembranaires (TM) et six domaines de boucle totale. Sur les six boucles, trois boucles sont orientées extracellulairement pour faciliter la liaison des ligands, tandis que les trois autres boucles intracellulaires sont couplées à une protéine G hétérotrimérique composée des sous-unités 1,2 Gα, Gβ et Gγ.
Les RCPG sont classés en plusieurs classes, y compris la classe A, la famille des récepteurs de la sécrétine de classe B, le glutamate de classe C, les récepteurs de phéromones d’accouplement fongique de classe D, les récepteurs de l’AMP cyclique de classe E et la classe F Frizzled/smoothened 3,4. Comme son nom l’indique, la sous-classe de classe A des RCPG de type rhodopsine comprend la rhodopsine, le RCPG critique responsable de la phototransduction et de la fonction visuelle. La rhodopsine contient toutes les caractéristiques clés pertinentes et les éléments structurels que l’on trouve dans le modèle canonique des RCPG, y compris les sept domaines hélicoïdaux TM mentionnés précédemment, les six boucles extracellulaires et intracellulaires, et l’association avec une protéine G hétérotrimérique, également connue sous le nom de transducine (Gt) dans les photorécepteurs 1,5,6,7. Dans la poche de liaison de la rhodopsine, le 11-cis-rétinal, le ligand chromophore sensible à la lumière, se lie à la rhodopsine sur la lysine 296 par une liaison de base de Schiff covalente, formant ainsi le 11-cis-rétinylidène 1,8. Lors de l’absorption d’un photon, le 11-cis-rétinylidène photoisomérise en tout-trans-rétinylidène, induisant un changement de conformation dans la rhodopsine. Par conséquent, le ligand 11-cis-rétinien est essentiel à la fonction du RCPG rhodopsine, et un approvisionnement robuste et efficace en 11-cis-rétinal doit être maintenu en permanence pour surmonter le taux de renouvellement élevé dans les photorécepteurs.
Les rétinaldéhydes tels que le 11-cis-rétinien appartiennent à un groupe de molécules collectivement appelées rétinoïdes, et les rétinoïdes biologiquement pertinents sont plus largement appelés vitamine A. Les rétinoïdes sont caractérisés par un groupe final cyclique connecté à une chaîne polyène conjuguée, avec un groupe final polaire à l’autre extrémité. Les rétinaldéhydes et les vitamères associés de la vitamine A ne font pas exception à cette caractérisation, car ils contiennent le cycle β-ionone comme groupe final cyclique, une chaîne polyène diterpénique et un groupe final polaire différent selon le vitamère, c’est-à-dire le groupe aldéhyde pour les rétinaldéhydes, le groupe hydroxyle pour les rétinols, le groupe carboxyle pour les acides rétinoïques, la liaison ester pour les esters de rétinyle, etc (Figure 1)9,10.
Les mammifères ne peuvent pas synthétiser la vitamine A de novo, mais les plantes le peuvent ; Par conséquent, tous les rétinoïdes présents dans les systèmes mammifères doivent provenir de l’alimentation des producteurs d’origine végétale jusqu’aux consommateurs de la chaîne alimentaire. Dans le modèle canonique du métabolisme de la vitamine A, le β-carotène, l’archétype de la provitamine A végétale, est absorbé dans l’entérocyte intestinal par le récepteur de piégage de classe B, membre 1 (SCARB1), clivé en deux molécules de tout-trans-rétinal par la β-carotène oxygénase 1 (BCO1/BCMO1), qui se lie à la protéine de liaison au rétinaldéhyde 2 (RBP2) et est réduite en tout-trans-rétinol par les rétinols déshydrogénases (RDH), convertis en esters de rétinyle par la lécithine rétinol acyltransférase (LRAT), puis envoyés dans la circulation sanguine sous forme de chylomicrons 11,12,13,14. Les esters de rétinyle, tels que le palmitate de rétinyle, en revanche, servent de provitamine A prédominante de sources animales. Le palmitate de rétinyle de la lumière intestinale est hydrolysé en tout-trans-rétinol par la carboxylestérase 1 (CES1) et se diffuse dans l’entérocyteintestinal 15. Le foie est le principal organe de stockage et homéostatique de l’homéostasie de la vitamine A, qui absorbe les esters de rétinyle dans ces chylomicrons, qui sont hydrolysés en tout-trans-rétinol lié à la protéine de liaison au rétinol cellulaire 1 (CRBP1) par les hydrolases d’esters de rétinyle, pénètre dans les cellules stellaires hépatiques et est reconverti en esters de rétinyle par LRAT pour le stockage13,16, 17. Aéroport Pour maintenir un niveau homéostatique de vitamine A dans l’organisme, le foie libère de la vitamine A sous forme de rétinol tout-trans lié à un complexe de transport sérique, composé de la protéine de liaison au rétinol 4 (RBP4) et de la transthyrétine (TTR)15,18,19. Ce complexe sera appelé holo-RBP4 dans ce manuscrit.
Pour utiliser cet apport systémique de vitamine A dans le sang, les tissus systémiques, y compris les tissus oculaires où une source robuste de vitamine A est maintenue, doivent disposer d’une méthode pour absorber l’holo-RBP4 dans les tissus. Dans la rétine riche en photorécepteurs du tissu oculaire, le récepteur membranaire stimulé par l’acide rétinoïque 6 (STRA6) est le transporteur impliqué dans cette fonction. Dans des études mécanistes, il a été démontré que STRA6 est capable de faciliter l’absorption de tout-trans-rétinol extracellulaire à partir de l’holo-RBP4 dans le RPE20. Ce tout-trans-rétinol importé entrera ensuite dans le cycle visuel, qui est le processus par lequel le tout-trans-rétinol est converti en 11-cis-rétinal dans l’EPR et le segment externe du photorécepteur, facilitant ainsi la fonction visuelle lorsqu’il est lié à la rhodopsine 9,21.
Une fois que le tout-trans-rétinol de l’holo-RBP4 circulatoire traverse la barrière hémato-rétinienne dans l’EPR du tissu oculaire par l’intermédiaire de STRA6, le tout-trans-rétinol dans l’EPR est d’abord estérifié en esters de rétinyle par LRAT, puis hydrolysé en 11-cis-rétinol par la protéine 65 kDa spécifique de l’épithélium pigmentaire rétinien (RPE65). Le 11-cis-rétinol est ensuite converti en 11-cis-rétinal par la rétinol déshydrogénase 5. Ce 11-cis-rétinien est ensuite transporté dans le segment externe (OS) du photorécepteur par la protéine de liaison au rétinoïde interphotorécepteur (IRBP)9,21. Dans le réticulum endoplasmique qui entoure le noyau photorécepteur dans la couche nucléaire externe (ONL), les RCPG de l’opsine sont synthétisés et transportés à travers le cil de connexion (CC). Les protéines motrices impliquées dans ce transport à travers le CC sont controversées, mais les hypothèses actuelles impliquent le transport intraflagellaire basé sur la kinésine et la dynéine (IFT) ou le transport basé sur la myosine comme étant des facilitateurs probables de ce processus 14,22,23,24,25,26. Une fois que ces deux composants se rencontrent dans les disques membraneux de l’OS, le 11-cis-rétinal et l’opsine forment du 11-cis-rétinylidène par le biais d’une liaison covalente de base de Schiff à la lysine 196 sur la rhodopsine, prête pour la phototransduction8.
Alors que l’expression de STRA6 dans l’EPR de la rétine aide à faciliter l’absorption de tout-trans-rétinol à partir de holo-RBP4, STRA6 ne s’est pas avéré être exprimé dans le foie, malgré son rôle en tant que principal organe homéostatique pour la vitamine A et ses capacités à absorber tout trans-rétinol à partir de holo-RBP4 15,19,27,28, 29,30,31. Finalement, un récepteur analogue appelé récepteur 2 de la protéine de liaison au rétinol 4 (RBPR2) a été découvert, montrant la capacité d’absorber du tout-trans-rétinol à partir de l’holo-RBP4, un peu comme STRA6, mais est exprimé dans le tissu hépatique32.
Par conséquent, une compréhension complète du rôle de la rhodopsine dans la fonction visuelle nécessite une compréhension des processus biologiques qui aboutissent à la régénération du pigment visuel. Ceci est, à son tour, intimement lié aux processus décrits précédemment, y compris le métabolisme des précurseurs de la provitamine A, le stockage dans le foie, la libération de holo-RBP4 par le foie et l’absorption éventuelle de holo-RBP4 par les récepteurs membranaires STRA6 et RBPR2. Comme mentionné ci-dessus, les modèles animaux tels que les souris restent l’un des premiers modèles dans l’étude de ces processus. Par conséquent, nous aimerions présenter une méthode d’extraction des rétinoïdes dans le tissu murin, ainsi qu’une méthode de chromatographie liquide à haute performance (HPLC) en phase normale qui permet de détecter et de quantifier ces rétinoïdes. À l’aide de ces méthodes, les rétinoïdes importants décrits ci-dessus, tels que le ligand rhodopsine 11-cis-rétinien ou le rétinoïde de transport principal all-trans-retinol, peuvent être analysés dans les organes oculaires, hépatiques et systémiques. En évaluant l’approvisionnement en rétinoïdes dans le tissu murin, notre compréhension des états pathologiques et des pathologies liées à l’approvisionnement logistique en rétinoïdes peut être encore plus avancée.
En plus de fonctionner comme un chromophore dans la fonction visuelle grâce à l’association avec les RCPG de l’opsine, les rétinoïdes jouent également un rôle majeur dans la signalisation cellulaire des mammifères par la signalisation de l’acide rétinoïque, facilitée par deux familles de récepteurs nucléaires, les récepteurs de l’acide rétinoïque (RAR) et les récepteurs X des rétinoïdes (RXR), qui se lient directement à l’ADN et régulent la transcription des gènes33. Ces deux familles ou récepteurs utilisent toutes deux des rétinoïdes sous forme d’acides rétinoïques comme ligand. Il a été démontré que les RAR ont une affinité pour l’acide tout-trans-rétinoïque et l’acide 9-cis-rétinoïque, tandis que les RXR expriment une affinité pour l’acide 9-cis-rétinoïque 34,35. Les acides rétinoïques en quantités incontrôlées sont tératogènes, et la signalisation de l’acide rétinoïque doit être extrêmement étroitement contrôlée36. La production d’acides rétinoïques pour la signalisation doit se produire localement et à des moments très spécifiques pour le bon développement des tissus, comme dans le développement du cerveau postérieur et des membres, mais d’innombrables autres exemples utilisent la signalisation de l’acide rétinoïque37,38. Au sein des cellules participant à la signalisation de l’acide rétinoïque, les acides rétinoïques sont synthétisés par deux groupes d’enzymes, les alcool/rétinol déshydrogénases (ADH/RDH) qui facilitent l’oxydation des rétinols absorbés par STRA6 ou RBPR2 en rétinaldéhydes, et les rétinaldéhydes déshydrogénases (RALDH) qui facilitent l’oxydation des rétinaldéhydes en acides rétinoïques39. Bien qu’ils ne participent pas à la signalisation des RCPG en soi, les acides rétinoïques se présentent néanmoins comme un rétinoïde crucial qui fonctionne également comme un ligand pour les récepteurs de signalisation.
Bien qu’elles ne soient pas décrites en détail ici, nous tenons à souligner les méthodes précédemment établies pour la détection des rétinoïdes à l’aide de la HPLC dans divers contextes, tels que la recherche sur les aliments et l’étude de la rhodopsine microbienne. Ces méthodes emploient différents objectifs et approches pour la détection des rétinoïdes, y compris l’utilisation de techniques de phase inverse qui nécessitent des phases mobiles moins volatiles et dangereuses 40,41,42, la détection des acides rétinoïques et de leurs isomères associés 40,41, et la purification et l’extraction à partir de différentes sources biologiques43. Notre méthode se concentre spécifiquement sur la détection du palmitate de rétinyle, des isomères du rétinaldéhyde et des isomères du rétinol dans les tissus de mammifères. Différents protocoles doivent être envisagés si le cas d’utilisation prévu diffère de cette application spécifique.
Protocole
REMARQUE : Toutes les expériences sur les animaux ont été approuvées par l’Institutional Animal Care and Use Committee (IACUC) de l’Université du Minnesota (protocole # 2312-41637A) et réalisées conformément à la déclaration de l’ARVO pour l’utilisation d’animaux dans la recherche ophtalmique et visuelle. Effectuez toutes les extractions dans l’obscurité, sous une faible lumière rouge pour l’éclairage. Soyez conscient de la lumière résiduelle émise par les écrans d’instruments et les LED accessoires.
1. Génération d’étalons de rétinoïdes spectrophotométriques et génération de courbes d’étalons externes
REMARQUE : Préparez un contenant de glace sèche pour l’entreposage temporaire des rétinoïdes avant l’analyse avec la CLHP.
- Peser une quantité arbitraire mais appropriée de rétinoïdes et les dissoudre dans un solvant approprié pour la quantification par spectrophotométrie.
REMARQUE : Le solvant de choix utilisé dans cette étude est l’éthanol, et les valeurs d’absorption molaire des rétinoïdes dissous dans l’éthanol sont détaillées dans le tableau 1. De l’éthanol anhydre de qualité HPLC doit être utilisé pour dissoudre les étalons et les échantillons. L’éthanol purifié uniquement par distillation forme un mélange azéotropique avec de l’eau, contenant environ 4 % d’eau en volume. L’eau est non miscible avec la phase mobile hexanoïque et entraînera l’hydratation de la phase stationnaire de silice, conduisant à une dégradation éventuelle de la colonne. - À l’aide de la loi de Beer-Lambert et de l’absorptivité molaire du rétinoïde pertinent, quantifier la concentration de l’étalon généré (tableau 1).
Absorbance = Absorbtivitty molaire (ε) × Concentration molaire × longueur du trajet - Effectuez des dilutions en série pour créer des concentrations qui peuvent générer une courbe standard dans la plage de quantification pour le tissu souhaité.
REMARQUE : Soyez conscient des limites fondamentales de la loi de Beer-Lambert, telles que son manque de validité avec des concentrations élevées d’analyte. Pour éviter ce problème, les étalons de rétinoïdes dilués doivent éviter de générer des valeurs d’absorbance supérieures à 1. Pour nos applications dans la quantification du rétinol et du rétinaldéhyde dans les organes murins, nous avons constaté qu’une courbe d’étalonnage avec une plage de 1 à 10 ng était capable de couvrir les quantités typiques trouvées. Pour la quantification du palmitate de rétinyle à partir du foie murin, nous avons constaté qu’une courbe d’étalonnage avec une plage de 20 à 80 μg était capable de couvrir les quantités typiques trouvées. - En modifiant progressivement le volume d’injection de la solution mère précédemment créée, modifiant ainsi progressivement la quantité injectée de rétinoïde, intégrez les pics pour générer une courbe standard externe adaptée à la quantification des rétinoïdes où l’intégration des pics est directement proportionnelle à la quantité de rétinoïde injectée.
2. Prélèvement de tissus et d’échantillons
REMARQUE : Préparez un contenant de glace sèche pour l’entreposage temporaire des tissus avant l’homogénéisation des tissus et l’extraction des rétinoïdes. Les quantités de tissu recommandées pour le prélèvement sont détaillées dans le tableau 2. Pour tenir compte des variations rétinoïdes dues aux variations de la teneur en sang de chaque tissu, l’extraction tissulaire doit être effectuée sur des souris complètement irriguées et l’extraction sanguine doit être effectuée sur des souris distinctes.
- Euthanasier les souris en suivant les directives établies par le protocole dicté par l’Institutional Animal Care and Use Committee (IACUC) (asphyxie au CO2 ici).
- Sang : Immédiatement après l’euthanasie, décapitez les souris à l’aide d’une paire de ciseaux et drainez le sang du tronc principal des souris dans un tube de 1,5 ml.
- Œil : À l’aide d’une paire de pinces, retirez les yeux de la tête décapitée.
- Cerveau : À l’aide d’une paire de petits ciseaux, coupez la tête décapitée et retirez le cerveau à l’aide d’une paire de pinces.
- Rein, foie, rate, cœur et poumon : À l’aide d’une paire de petits ciseaux, faites une incision dans l’abdomen, coupez dans la direction supérieure le long de la ligne médiane et coupez à travers le sternum et la cage thoracique. Retirez le tissu exposé à l’aide d’une pince.
3. Homogénéisation des tissus
REMARQUE : Si l’analyse de plus petites partitions d’organes est souhaitée, comme dans des organes plus grands (par exemple, le foie ou le tissu pulmonaire), l’organe entier doit être homogénéisé pour éviter les différences de teneur en rétinoïdes dans différentes parties du tissu. Au lieu de cela, divisez l’homogénat si de plus petites quantités de tissu sont souhaitées. Un schéma du protocole est détaillé à la figure 2. Ce protocole modifié a été adapté de Kane et Napoli44.
- Placez le mouchoir dans le tube du broyeur de tissus, avec 50 % de solution saline glacée (0,9 %) et 50 % de méthanol. Voir le tableau 2 pour le volume utilisé pour chaque type de tissu.
- Placez le pilon dans le tube du broyeur, effectuez lentement et doucement cinq rotations complètes avec le pilon pour obtenir un homogénat.
- Transférez les échantillons dans des tubes de 15 mL immédiatement après l’homogénéisation.
- Ajouter 2 ml de méthanol et laisser reposer 15 min à température ambiante.
REMARQUE : Si l’on souhaite analyser les dérivés de l’oxime de rétinaldéhyde, ajouter 1 mL de chlorhydrate d’hydroxylamine 0,1 M dans 0,1 M HEPES (pH 6,5) (figure 1).
4. Extraction des rétinoïdes
ATTENTION : L’hexane est hautement inflammable, très volatil et très toxique. Des respirateurs approuvés par le National Institute for Occupational Safety and Health (NIOSH), des lunettes de protection, des gants en butyle et une hotte doivent être utilisés lors de la manipulation de l’hexane. Lors de l’évaporation de l’hexane à partir d’échantillons, une forme d’appareil de circulation d’air amélioré est recommandée pour éviter l’accumulation de vapeurs de solvants, par exemple, un appareil d’aspiration de tuba.
- Ajouter 10 mL d’hexane à l’homogénat et mélanger le tube horizontalement pendant au moins 10 s.
REMARQUE : Il est essentiel que les phases se mélangent complètement. - Centrifuger le mélange homogénat/hexane pendant 3 min à 1 000 × g pour faciliter la séparation des phases.
- Effectuer l’extraction 2x pour assurer l’extraction totale des rétinoïdes de l’homogénat. Répétez les étapes 4.1 et 4.2.
- Prélevez la couche d’hexane à l’aide d’une pipette et placez la couche d’hexane dans un ensemble séparé de tubes en verre de 15 mL pour l’évaporation sous vide.
REMARQUE : Pour l’évaporation, utilisez des tubes en verre de 15 mL pour éviter l’adhérence des rétinoïdes aux parois du tube. - À l’aide d’une centrifugeuse à vide, évaporez complètement l’hexane.
5. Resuspension et analyse HPLC
REMARQUE : Étant donné que le système HPLC utilisé dans ce manuscrit était un système de pompe binaire, la phase mobile à quatre composants a été prémélangée dans une bouteille unique avant de fonctionner.
ATTENTION : Les quatre solvants organiques utilisés dans cette méthode sont hautement inflammables, très volatils et hautement toxiques. Le 1,4-dioxane est sensible à la formation de peroxyde explosif lors de l’exposition à l’oxygène. Gardez tous les récipients contenant du 1,4-dioxane fermés lorsqu’ils ne sont pas utilisés. Des respirateurs approuvés par le National Institute for Occupational Safety and Health (NIOSH), des lunettes de protection, des gants en butyle et une hotte doivent être utilisés lors de la manipulation de ces solvants. Lors de l’utilisation de ces solvants dans une HPLC, une certaine forme d’appareil de circulation d’air amélioré est recommandée pour éviter l’accumulation de vapeurs de solvant, par exemple, un appareil d’aspiration de tuba.
- Remettre en suspension le tube séché de 15 mL avec 100 μL d’hexane ; Bien vortex pour s’assurer que tous les rétinoïdes sont dissous.
- Pipetez les 100 μL d’hexane dans un seul insert en verre pour l’analyse HPLC.
- Mise en place de l’exploitation HPLC (adapté de Landers et Olson45) : phase mobile : 85,4 % d’hexane (v/v), 11,2 % d’acétate d’éthyle (v/v), 2 % de dioxane (v/v), 1,4 % de 1-octanol (v/v) ; colonne : deux colonnes de 4,6 mm ID x 250 nm, 5 μm, connectées en série ; un thermostat multicolonne Température : 25 °C ; volume d’injection : 100 μL ; débit : 1 mL/min ; Durée : 40 min. Utiliser la détection d’absorbance du spectre UV ; gardez l’option cochée pour acquérir un spectre UV de 200 nm à 400 nm.
6. Identification et intégration des pics
- Identifier les pics à l’aide du temps de rétention et des spectres UV de chaque rétinoïde d’intérêt, tels qu’observés lors de l’analyse des étalons de rétinoïdes (figure 3, tableau 3 et tableau 4).
- À l’aide du système de données chromatographiques du système HPLC choisi, intégrez les pics identifiés. L’intégration, ou l’aire sous la courbe, est directement proportionnelle à la quantité d’analyte. Reportez-vous à la courbe standard externe générée à l’étape 1 pour quantifier l’analyte.
- Pour l’analyse de chromatogrammes générés à partir de tissus biologiques, utilisez l’intégration manuelle plutôt que l’intégration automatique offerte par les systèmes de données chromatographiques typiques, car des variabilités de paramètres tels que le temps de rétention sont souvent observées dans de tels échantillons.
- Assurez-vous que les chromatogrammes ne présentent pas d’irrégularités qui pourraient indiquer des problèmes pendant l’exécution, tels que des lignes de base bruyantes ou des pics non gaussiens. Ces problèmes indiquent des contaminants dans la HPLC ou une usure sur les colonnes et doivent être corrigés pour une analyse valide.
Résultats
Ici, nous avons utilisé la méthode décrite ci-dessus pour détecter et quantifier les rétinoïdes dans les tissus oculaires et systémiques murins et avons généré des chromatogrammes représentatifs. Nous donnerons en outre un résumé des rétinoïdes typiques qui peuvent être détectés dans ces tissus.
À l’âge de 6 mois, des souris ont été euthanasiées par asphyxie au CO2 . Pour maintenir le contenu en rétinoïdes oculaires, les souris ont été adaptées à l’obscurité pendant 2 jours avant l’euthanasie et l’extraction. Deux yeux, 0,2 g de foie et 75 μL de sang ont été prélevés pour l’extraction des rétinoïdes et l’analyse HPLC ultérieure. Pour le tissu oculaire, un œil a été extrait sans ajout d’hydroxylamine, tandis que l’autre a été soumis à un traitement à l’hydroxylamine. Pour le foie et le sang, le traitement à l’hydroxylamine n’était pas nécessaire car les rétinaldéhydes ne sont généralement pas détectés dans ces tissus.
Dans le chromatogramme de l’œil de souris non traité avec de l’hydroxylamine, le 13-cis-rétinal, l’un des deux isomères non canoniques du rétinaldéhyde, a été identifié. De plus, le 11-cis-rétinien et le tout-trans-rétinien, les deux isomères canoniques du rétinaldéhyde, ont été identifiés. Dans les deux chromatogrammes, l’intermédiaire du cycle visuel 11-cis-rétinol, ainsi que la principale forme de transport de la vitamine A, le tout-trans-rétinol, ont tous deux été identifiés (Figure 4A).
Dans le chromatogramme de l’œil de souris traité à l’hydroxylamine, tous les isomères de rétinaldéhyde mentionnés précédemment étaient encore présents. Cependant, les temps de rétention de ces isomères ont été considérablement augmentés. De plus, ces isomères du rétinaldéhyde se présentent maintenant à la fois sous forme d’isomères syn et d’anti-isomères. Lors de la quantification par intégration de pics, les pics syn et anti doivent être additionnés pour obtenir une valeur d’intégration précise. Le 11-cis-rétinol et le tout-trans-rétinol étaient toujours présents (figure 4B).
Dans le chromatogramme du tissu hépatique de souris, le palmitate de rétinyle et le tout-trans-rétinol ont été identifiés dans ces tissus. Le palmitate de rétinyle, un ester de rétinyle, sert de principale forme de stockage de la vitamine A chez les mammifères et peut être trouvé en quantités importantes dans le tissu hépatique des mammifères. Le foie libère de la vitamine A dans les tissus systémiques sous forme d’holo-RBP4, contenant du tout-trans-rétinol dans le complexe RBP4-transthryétine. Par la suite, un grand pic de rétinol tout trans peut être identifié dans ce chromatogramme (Figure 4C).
Dans le chromatogramme du sang de souris, un grand pic de tout trans-rétinol a été identifié. Étant donné que l’holo-RBP4 du foie est libéré dans les tissus systémiques par le système circulatoire, cela est conforme aux attentes (Figure 4D). L’absorbance caractéristique du spectre UV (~250-400 nm) des isoformes rétinoïdes sur les pics HPLC résolus en fonction du temps peut être utile pour confirmer initialement la qualité de la présence de l’isoforme dans un pic respectif particulier (Figure 5).
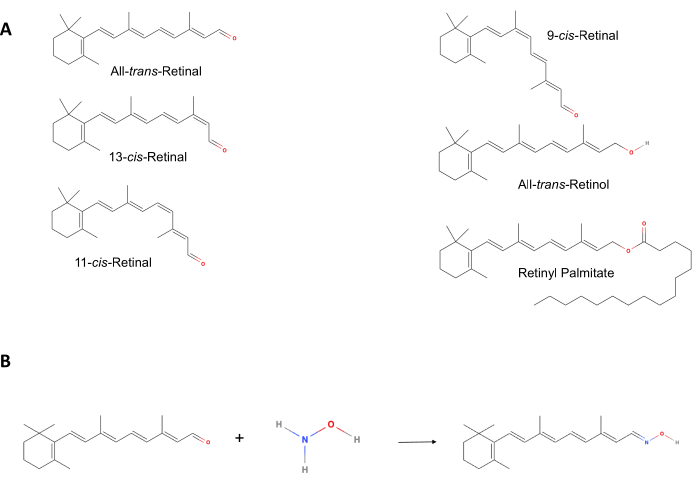
Figure 1 : Structures chimiques des rétinoïdes. (A) Ces rétinoïdes se trouvent généralement dans les tissus murins extraits. Notez les différents groupes d’extrémités polaires, ainsi que les différents emplacements des doubles liaisons cis dans les isomères rétinoïdes. (B) La conversion des rétinaldéhydes en oximes rétiniens augmente l’efficacité de l’extraction, empêche la coélution des pics avec le palmitate de rétinyle, ainsi que la coélution à l’intérieur des isomères du rétinaldéhyde. Veuillez cliquer ici pour voir une version agrandie de cette figure.

Figure 2 : Flux de travail pour le prélèvement, l’homogénéisation, l’extraction et l’analyse des rétinoïdes. Des échantillons de rétines et de tissus de souris adaptées à l’obscurité ont été homogénéisés et extraits. Étape 1 : Après l’euthanasie des souris selon les directives, du sang et divers tissus sont prélevés. Etapes 2-4 : L’homogénéisation des tissus se fait ensuite avec une solution saline et du méthanol, avec du chlorhydrate d’hydroxylamine pour les analyses quantitatives. Étapes 5 à 7 : Les rétinoïdes sont traités à l’aide d’hexane, suivis d’une évaporation. Étapes 8 et 9 : Remise en suspension avec 100 μL d’hexane pour s’assurer que tous les rétinoïdes sont dissous. Étape 10 : Enfin, les échantillons sont analysés à l’aide de la HPLC. Abréviation : HPLC = High-performance Liquid Chromatography. Veuillez cliquer ici pour voir une version agrandie de cette figure.

Figure 3 : Chromatogramme des étalons rétinoïdes et des étalons rétinoïdes traités à l’hydroxylamine. (A) Ce chromatogramme contient des étalons de palmitate de rétinyle, 13-cis-rétinal, 11-cis-rétinal, tout-trans-rétinal, 11-cis-rétinol, 13-cis-rétinol et tout-trans-rétinol. (B) Ce chromatogramme contient des étalons de palmitate de rétinyle, de 13-cis-rétinal, de 11-cis-rétinal, de 11-cis-rétinol, de 13-cis-rétinol et de tout trans-rétinol. Ce chromatogramme contient les isomères syn et anti-oxime rétinaldéhyde, en plus des isomères du rétinol. Veuillez cliquer ici pour voir une version agrandie de cette figure.

Figure 4 : Chromatogrammes représentatifs. (A) Chromatogramme représentatif du tissu oculaire de la souris. Ce chromatogramme contient des rétinoïdes généralement présents dans le tissu oculaire murin, y compris des isomères de rétinaldéhyde, en plus des isomères du rétinol. (B) Chromatogramme représentatif du tissu oculaire de souris traité à l’hydroxylamine. Notez qu’au lieu des rétinaldéhydes non chimiquement modifiés trouvés dans les chromatogrammes précédents (Figure 4A), ce chromatogramme contient les isomères syn et anti-oxime retinaldeyde, en plus des isomères du rétinol. (C) Chromatogramme représentatif du tissu hépatique de souris. Ce chromatogramme contient des rétinoïdes généralement trouvés dans le tissu hépatique murin, y compris le palmitate de rétinyle et le tout-trans-rétinol. (D) Chromatogramme représentatif du sang de souris. Ce chromatogramme contient des rétinoïdes que l’on trouve généralement dans le sang murin, y compris le tout-trans-rétinol. Veuillez cliquer ici pour voir une version plus grande de cette figure.
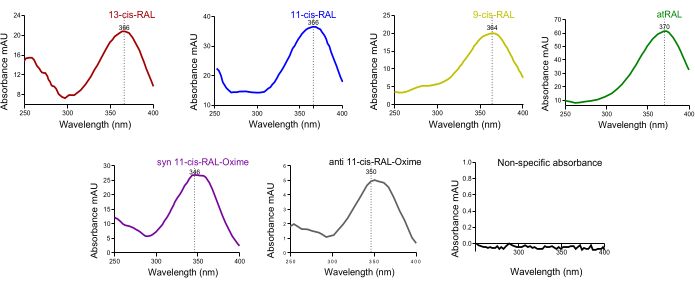
Figure 5 : Spectre d’absorbance UV des isomères du rétinaldéhyde du tissu oculaire murin. Spectres d’absorbance de (A) 13-cis-rétinal, (B) 11-cis-rétinal, (C) 9-cis-rétinal, (D) tout-trans-rétinien, (E) syn 11-cis-rétinal, (F) oxime anti-11-cis-rétinien. Veuillez cliquer ici pour voir une version agrandie de cette figure.

Figure 6 : Vue d’ensemble des modules HPLC, de l’écoulement de phase mobile et d’autres instruments. L’écoulement en phase mobile commence à partir des flacons de solvant préparés et est pompé à haute pression par la pompe binaire dans l’échantillonneur automatique, où l’analyte est incorporé dans le flux de solvant. La phase mobile et l’analyte atteignent le compartiment de la colonne à température régulée, et enfin, dans le détecteur à barrettes de diodes pour la mesure. (A) Écran de moniteur teinté rouge minimisant la photoisomérisation des rétinoïdes. (B) Pompe binaire. (C) Échantillonneur de flacons. (D) Thermostat multicolonne. (E) Détecteur à barrettes de diodes. (F) Collecteur de fractions analytiques. (G) Conteneur à déchets en polyéthylène à haute densité. (H) De gauche à droite, bouchon à sertir en aluminium, insert de 250 μL avec pieds en polymère, flacon à sertir teinté ambré, assemblage final du flacon d’injection. (I) Centrifugeuse réfrigérée gauche. À droite, concentrateur de centrifugeuse. Veuillez cliquer ici pour voir une version agrandie de cette figure.
| Composé | Absorptivité molaire (ε) | Solvant | Référence |
| Palmitate de rétinyle | 49260 | Éthanol | Hubbard et coll.49 |
| 13-cis-rétinal | 35500 | Éthanol | Hubbard et coll.49 |
| 11-cis-rétinal | 24935 | Éthanol | Hubbard et coll.49 |
| 9-cis-rétinal | 36100 | Éthanol | Robeson et coll.51 |
| All-trans-rétinien | 42880 | Éthanol | Hubbard et coll.49 |
| 11-cis-rétinol | 34890 | Éthanol | Hubbard et coll.49 |
| 13-cis-rétinol | 48305 | Éthanol | Robeson et al.50 et Robeson et al.51 |
| All-trans-Rétinol | 52770 | Éthanol | Hubbard et coll.49 |
Tableau 1 : Absorptivité molaire des rétinoïdes dans l’éthanol. Les valeurs d’absorptivité molaire des rétinoïdes ont été recueillies à partir de Kane et Napoli44, Hubbard et al.46, Robeson et al.47 et Robeson et al.48. L’absorption molaire dépend du solvant. Les valeurs énumérées ici sont spécifiques aux rétinoïdes dissous dans l’éthanol.
| Tissu | Quantité de tissu prélevé | Volume pour l’homogénéisation |
| Sang | 75 μL | N/A |
| Foie | 0,2 g | 2 mL |
| Rein | 2 reins entiers | 2 mL |
| Peau | 0,2 g | 1 mL – 1,5 mL |
| Rate | 1 rate entière | 1 mL |
| Oeil | Les deux rétine, pool 4 rétine | 1 mL |
| Cerveau | 1 cerveau entier | 2 mL |
| Cœur | 1 cœur entier | 1 mL |
| Poumon | 0,2 g | 2 mL |
Tableau 2 : Quantité de tissu recommandée par analyse. Quantité de tissu par analyse et volume de 50 % de solution saline glacée (0,9 %) et de 50 % de méthanol pour l’homogénéisation des tissus, comme recommandé par Kane et Napoli44.
| Composé | Temps de rétention (min) | Absorbance UV Maxima (nm) |
| Palmitate de rétinyle | 5.177 | 326 |
| 13-cis-rétinal | 7.268 | 366 |
| 11-cis-rétinal | 7.691 | 366 |
| 9-cis-rétinal | 7.931 | 364 |
| All-trans-rétinien | 8.993 | 370 |
| 11-cis-rétinol | 17.003 | 318 |
| 13-cis-rétinol | 17.83 | 328 |
| All-trans-Rétinol | 23.933 | 326 |
Tableau 3 : Temps de rétention et longueurs d’onde d’absorbance maximale des rétinoïdes. Ces valeurs ont été observées lorsqu’elles étaient utilisées avec la méthode décrite et la phase mobile, comme détectée avec le détecteur à barrettes de diodes référencé.
| Composé | Temps de rétention (min) | Absorbance UV Maxima (nm) |
| Syn 11-cis-Oxime rétinien | 9.59 | 346 |
| Syn Oxime tout-trans-rétinien | 10.6 | 356 |
| Syn 13-cis-Oxime rétinien | 11.3 | 352 |
| Oxime anti-13-cis-rétinien | 13 | 356 |
| Oxime anti-cis-rétinien 11 | 15.1 | 350 |
| Anti Oxime tout-trans-rétinien | 19.7 | 360 |
Tableau 4 : Temps de rétention et longueurs d’onde d’absorbance maximale des rétinaldéhydes traités à l’hydroxylamine, résultant en isomères syn et anti-oxime de chaque rétinaldéhyde. Ces valeurs ont été observées lorsqu’elles étaient utilisées avec la méthode décrite et la phase mobile, comme détectée avec le détecteur à barrettes de diodes référencé.
Discussion
Dans cette méthode, la HPLC en phase normale est utilisée pour détecter et quantifier les rétinoïdes pertinents, y compris les esters de rétinyle, les rétinaldéhydes et les rétinols. Étant donné l’importance du 11-cis-rétinal en tant que chromophore critique dans l’activation du RCPG de la rhodopsine, une méthode capable de détecter les métabolites liés à la production de 11-cis-rétinal est essentielle à l’étude de la fonction visuelle globale. Le principal avantage de cette méthode est que tous les isomères pertinents des rétinaldéhydes et des rétinols peuvent être détectés et quantifiés simultanément en une seule analyse. Étant donné la rareté des tissus expérimentaux viables, cette méthode permet une utilisation efficace des tissus dans la détection des rétinoïdes. Bien que l’utilisation de phases mobiles à base d’hexane et d’acétate d’éthyle ait été signalée dans la séparation des rétinoïdes49, l’ajout de 1,4-dioxane et de 1-octanol améliore la résolution des isomères rétinoïdes. Le 1,4-dioxane est nécessaire à la résolution du 13-cis-rétinol et du 11-cis-rétinol50, tandis que les alcools à longue chaîne tels que le 1-octanol améliorent encore la séparation des isomères du rétinol 45,51,52.
Pour la quantification des isomères rétinaldéhydes, une conversion préalable en oximes rétinaldéhydes correspondants avec de l’hydroxylamine est nécessaire, car le groupe aldéhyde réactif est susceptible de réagir avec d’autres biomolécules telles que les protéines et les lipides 45,53,54. Les oximes de rétinaldéhyde sont plus facilement extraits et provoquent l’éluation des pics de rétinaldéhyde plus tard dans la course, empêchant ainsi la coélution des pics avec le groupe inconnu de pics et le pic de palmitate de rétinyle qui élue à ~5-8 min pour les tissus biologiques. Le traitement des rétinaldéhydes avec de l’hydroxylamine empêche également la co-élution des rétinaldéhydes avec des temps d’élution similaires45. La conversion en oximes de rétinaldéhyde génère à la fois des isomères syn et anti-isomères, qui éluent à deux moments différents avec deux pics différents pour chaque isomère de rétinaldéhyde. L’intégration des deux pics doit être additionnée pour quantifier correctement chaque isomère de rétinaldéhyde. Outre le temps de rétention, les spectres UV fournissent une autre mesure qui peut être utilisée dans l’identification des pics. Chaque rétinoïde présente un maximum d’absorption UV légèrement différent. Lorsqu’elles sont prises en compte avec le temps de rétention, ces deux mesures permettent d’identifier avec précision les pics (tableau 3 et tableau 4).
Alors que la présence d’isomères canoniques du rétinaldéhyde tels que le 11-cis-rétinien et le tout-trans-rétinien est attendue dans le tissu oculaire, le 11-cis-rétinal étant le chromophore critique du ligand de la rhodopsine et le tout-trans-rétinien étant le ligand photoisomérisé, d’autres isomères non canoniques du rétinaldéhyde sont détectés avec cette méthode. En particulier, le 13-cis-rétinal a été facilement détecté dans les analyses HPLC de tissu oculaire murin au cours de notre analyse (Figure 4A-D). L’apparition de ces rétinaldéhydes non canoniques n’est pas complètement inattendue, cependant, le 13-cis-rétinal et le 9-cis-rétinal sont des sous-produits connus résultant du stress induit par la lumière sur la rétine55,56. Ces isomères du rétinaldéhyde ne participent pas à la voie canonique connue de la cascade de phototransduction et leur destin métabolique reste relativement inconnu. Cependant, il a été démontré que le 9-cis-rétinal se lie également de manière stable à la poche de liaison de la rhodopsine, formant de l’isorhodopsine. Le rôle de l’isorhodopsine n’a pas encore été entièrement caractérisé, mais des études ont montré que l’isorhodopsine présente des capacités photosensibles, un peu comme la rhodopsine à base de 11-cis-rétinal57,58. À tout le moins, la capacité du 9-cis-rétinien à former de manière stable de l’isorhodopsine et à photoisomériser en tout-trans-rétinal fournit une explication raisonnable de son absence dans notre analyse HPLC56. Le 13-cis-rétinal, en revanche, n’a pas démontré sa participation à une voie biochimique oculaire connue, et son accumulation dans le tissu oculaire pourrait entraîner un stress oxydatif dans la rétine 55,59,60.
Bien que le 9-cis-rétinien ne se trouve généralement pas dans le tissu murin, il convient de mentionner que la méthode traitée à l’hydroxylamine n’est pas une méthode viable pour la séparation et la quantification du 9-cis-rétinal. Les pics pour le syn 9-cis-rétinal et le syn 13-cis-rétinal coéluseront à 11,2 min. Dans les cas où des quantités importantes de 9-cis-rétinal sont attendues, par exemple lorsqu’il est appliqué de manière exogène, seule la quantification de la combinaison du 9-cis-rétinal et du 13-cis-rétinal sera possible. Pour l’identification qualitative, la mise en œuvre de la méthode sans traiter le tissu avec de l’hydroxylamine permet de séparer complètement les pics 13-cis-rétiniens et 9-cis-rétiniens.
Outre le tissu oculaire, cette méthode peut également être facilement appliquée aux tissus systémiques. Bien que les rétinaldéhydes sous leurs diverses formes isomériques ne se trouvent généralement pas dans les tissus systémiques, le tout-trans-rétinol lié à la protéine de liaison au rétinol 4 (holo-RBP4) est la principale forme de transport de la vitamine A dans les organismes mammifères et le tout-trans-rétinol peut être facilement détecté dans le sang à l’aide de cette méthode. Outre le sang, le tout-trans-rétinol peut également être détecté dans tous les tissus systémiques. Par conséquent, en utilisant cette méthode, un profil rétinoïde systémique complet à l’échelle du tissu peut être créé à l’aide de cette méthode.
Étant donné que les rétinaldéhydes, en particulier le ligand critique de la rhodopsine 11-cis-rétinal, sont extrêmement sensibles à la photoisomérisation, il est essentiel que des mesures préventives soient prises pour prévenir l’exposition accidentelle à la lumière au cours de l’une des étapes décrites ci-dessus. Outre les sources évidentes provenant de l’éclairage des pièces et des tableaux de bord, nous avons constaté que la lumière errante des LED accessoires de divers instruments, tels que ceux que l’on trouve derrière les instruments, y compris la HPLC elle-même, est une source majeure d’exposition accidentelle à la lumière (Figure 6). De plus, nous avons constaté qu’une chambre noire dédiée était essentielle à la manipulation correcte des isomères du rétinaldéhyde et des tissus expérimentaux. Outre la minimisation de la lumière, nous recommandons que les tissus soient traités rapidement et rapidement après l’euthanasie et la récolte, car la dégradation des isomères du rétinaldéhyde se produit même en l’absence de lumière. Idéalement, le prélèvement de tissus, l’extraction et l’analyse HPLC devraient tous être terminés le même jour.
Les tissus qui ne sont pas traités immédiatement doivent être conservés dans l’obscurité à -80 °C et ne doivent pas être conservés plus d’une semaine avant d’être traités. Comme nous l’avons mentionné ci-dessus, tous les solvants utilisés dans la phase mobile et dans les étapes d’extraction de la méthode ci-dessus sont hautement toxiques, volatils et inflammables. Des procédures et un équipement appropriés doivent être utilisés lors de la manipulation de ces solvants dangereux. L’équipement de protection individuelle (EPI) approprié, comme des gants en butyle, des respirateurs approuvés par le NIOSH et des lunettes de protection, doit être enfilé avant de manipuler des solvants, et tous les transferts de solvants doivent être effectués à l’intérieur d’une hotte. Sachez que le 1,4-dioxane est susceptible de former du peroxyde explosif lorsqu’il est exposé à l’oxygène et gardez tous les contenants de solvant contenant du 1,4-dioxane hermétiquement fermés à l’air.
Si une méthode HPLC en phase normale n’est pas viable en raison de matériaux ou d’équipements inadéquats, il existe des méthodes en phase inverse plus typiques avec des solvants moins volatils tels que l’acétonitrile et l’eau pour détecter et quantifier les rétinaldéhydes et les rétinols. Cependant, ces méthodes ne sont pas en mesure de séparer les isomères et ne peuvent détecter que les rétinaldéhydes totaux ou les rétinols totaux44,54.
Déclarations de divulgation
Les auteurs ne déclarent aucun conflit d’intérêts.
Remerciements
Ce travail a été soutenu par des subventions NIH-NEI (EY030889 et 3R01EY030889-03S1) et en partie par des fonds de démarrage de l’Université du Minnesota à G.P.L. Nous tenons également à remercier le National Eye Institute de nous avoir fourni la norme 11-cis-rétinienne utilisée dans ce manuscrit.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 1-octanol, adapté à la HPLC, &ge ; 99,5 % | Sigma-Aldrich, Millipore Sigma | 203-917-6 | |
| 1,4-dioxane, adapté à la HPLC, &ge ; 99,5 % | Sigma-Aldrich, Millipore Sigma | 204-661-8 | |
| 11-cis-rétinal | National Eye Institute | N/A | |
| 11-cis-rétinol | Toronto Research Chemicals | TRC-R252105 | |
| 13-cis-retinal | Toronto Research Chemicals | TRC-R239900 | |
| 13-cis-retinol | Toronto Research Chemicals | TRC-R252110 | |
| Produits chimiques de recherche entièrement trans-rétiniens | de Toronto | TRC-R240000 | |
| Produits chimiques de recherche entièrement trans-rétinol | de Toronto Acétate d’éthyle | TRC-R252002 | |
| adapté à la CLHP, etc. ; 99,7 % | Sigma-Aldrich, Millipore Sigma | 205-500-4 | |
| Hexane, HPLC Grade | Fisher Scientific, Spectrum Chemical | 18-610-808 | |
| Méthanol (HPLC) | Fisher Scienctific | A452SK-4 | |
| Palmitate de rétinyle | Toronto Research Chemicals | TRC-R275450 | |
| Chlorure de sodium (cristallin/certifié ACS) | Fisher Scientific | S271-500 | |
| Instruments | |||
| 1260 Collecteur de fractions analytique Infinity II | Agilent | G1364F | |
| 1260 Pompe binaire Infinity II | Agilent | G7112B | |
| 1260 Détecteur à barrettes de diodes Infinity II | Agilent | G7115A | |
| 1260 Infinity II Thermostat multicolonnes | Agilent | G7116A | |
| 1260 Infinity II Vialsampler | Agilent | G7129A | |
| ST40R Centrifugeuse réfrigérée | Thermo Scientific | TSST40R | |
| Vacufuge Plus Concentrateur de centrifugeuse | Eppendorf | 22820168 | |
| Consommables | |||
| 2 mL Flacons à vis ambrée | Agilent | 5188-6535 | |
| Capuchon à sertir avec septa en PTFE/caoutchouc rouge, 11 mm | Agilent | 5183-4498 | |
| Tubes à centrifuger coniques en verre jetables | Millipore Sigma | CLS9950215 | |
| Tube à bouchon à vis, 15 mL | Sarstedt | 62.554.502 | |
| Insert de flacon, 150 µ ; L, verre avec pieds en polymère | Agilent | 5183-2088 |
Références
- Palczewski, K., et al. Crystal structure of rhodopsin: A G protein-coupled receptor. Science. 289 (5480), 739-745 (2000).
- Rosenbaum, D. M., Rasmussen, S. G. F., Kobilka, B. K. The structure and function of G-protein-coupled receptors. Nature. 459 (7245), 356-363 (2009).
- Alhosaini, K., Azhar, A., Alonazi, A., Al-Zoghaibi, F. GPCRs: The most promiscuous druggable receptor of the mankind. Saudi Pharm J. 29 (6), 539-551 (2021).
- Hu, G. -M., Mai, T. -L., Chen, C. -M. Visualizing the GPCR network: Classification and evolution. Sci Rep. 7 (1), 15495(2017).
- Lerea, C. L., Somers, D. E., Hurley, J. B., Klock, I. B., Bunt-Milam, A. H. Identification of specific transducin α subunits in retinal rod and cone photoreceptors. Science. 234 (4772), 77-80 (1986).
- Gao, Y., Hu, H., Ramachandran, S., Erickson, J. W., Cerione, R. A., Skiniotis, G. Structures of the rhodopsin-transducin complex: Insights into G protein activation. Mol Cell. 75 (4), 781-790.e3 (2019).
- Zhou, X. E., Melcher, K., Xu, H. E. Structure and activation of rhodopsin. Acta Pharmacol Sin. 33 (3), 291-299 (2012).
- Robinson, P. R., Cohen, G. B., Zhukovsky, E. A., Oprian, D. D. Constitutively active mutants of rhodopsin. Neuron. 9 (4), 719-725 (1992).
- Kiser, P. D., Golczak, M., Palczewski, K. Chemistry of the retinoid (visual) cycle. Chem Rev. 114 (1), 194-232 (2014).
- Sani, B. P., Hill, D. L. [3] Structural characteristics of synthetic retinoids. Methods Enzymol. 189, 43-50 (1990).
- Lobo, G. P., Amengual, J., Palczewski, G., Babino, D., von Lintig, J. Carotenoid-oxygenases: Key players for carotenoid function and homeostasis in mammalian biology. Biochim Biophys Acta. 1821 (1), 78-87 (2012).
- Amengual, J., et al. Two carotenoid oxygenases contribute to mammalian provitamin A metabolism. J Biol Chem. 288 (47), 34081-34096 (2013).
- Harrison, E. H. Mechanisms involved in the intestinal absorption of dietary vitamin A and provitamin A carotenoids. Biochim Biophys Acta. 1821 (1), 70-77 (2012).
- Leung, M., et al. The logistical backbone of photoreceptor cell function: Complementary mechanisms of dietary vitamin A receptors and rhodopsin transporters. Int J Mol Sci. 25 (8), 4278(2024).
- Martin Ask, N., Leung, M., Radhakrishnan, R., Lobo, G. P. Vitamin A transporters in visual function: A mini review on membrane receptors for dietary vitamin A uptake, storage, and transport to the eye. Nutrients. 13 (11), 3987(2021).
- Harrison, E. H. Carotenoids, β-apocarotenoids, and retinoids: The long and the short of it. Nutrients. 14 (7), 1411(2022).
- Li, Y., Wongsiriroj, N., Blaner, W. S. The multifaceted nature of retinoid transport and metabolism. Hepatobiliary Surg Nutr. 3 (3), 126-139 (2014).
- D'Ambrosio, D. N., Clugston, R. D., Blaner, W. S. Vitamin A metabolism: An update. Nutrients. 3 (1), 63-103 (2011).
- Yamamoto, Y., et al. Interactions of transthyretin (TTR) and retinol-binding protein (RBP) in the uptake of retinol by primary rat hepatocytes. Exp Cell Res. 234 (2), 373-378 (1997).
- Kawaguchi, R., et al. A membrane receptor for retinol binding protein mediates cellular uptake of vitamin A. Science. 315 (5813), 820-825 (2007).
- Kiser, P. D., Golczak, M., Maeda, A., Palczewski, K. Key enzymes of the retinoid (visual) cycle in vertebrate retina. Biochim Biophys Acta. 1821 (1), 137-151 (2012).
- Radhakrishnan, R., et al. The role of motor proteins in photoreceptor protein transport and visual function. Ophthalmic Genet. 43 (3), 285-300 (2022).
- Solanki, A. K., et al. Loss of motor protein MYO1C causes rhodopsin mislocalization and results in impaired visual function. Cells. 10 (6), 1322(2021).
- Liu, X., Udovichenko, I. P., Brown, S. D. M., Steel, K. P., Williams, D. S. Myosin VIIa participates in opsin transport through the photoreceptor cilium. J Neurosci. 19 (15), 6267-6274 (1999).
- Insinna, C., Besharse, J. C. Intraflagellar transport and the sensory outer segment of vertebrate photoreceptors. Dev Dyn. 237 (8), 1982-1992 (2008).
- Krock, B. L., Mills-Henry, I., Perkins, B. D. Retrograde intraflagellar transport by cytoplasmic dynein-2 is required for outer segment extension in vertebrate photoreceptors but not arrestin translocation. Invest Ophthalmol Vis Sci. 50 (11), 5463-5471 (2009).
- Blaner, W. S. STRA6, a cell-surface receptor for retinol-binding protein: The plot thickens. Cell Metab. 5 (3), 164-166 (2007).
- Bouillet, P., et al. Developmental expression pattern of Stra6, a retinoic acid-responsive gene encoding a new type of membrane protein. Mech Dev. 63 (2), 173-186 (1997).
- Blomhoff, R., Norum, K. R., Berg, T. Hepatic uptake of [3H]retinol bound to the serum retinol binding protein involves both parenchymal and perisinusoidal stellate cells. J Biol Chem. 260 (25), 13571-13575 (1985).
- Kelly, M., von Lintig, J. STRA6: role in cellular retinol uptake and efflux. Hepatobiliary Surg Nutr. 4 (4), 229-242 (2015).
- Quadro, L., et al. The role of extrahepatic retinol binding protein in the mobilization of retinoid stores. J. Lipid Res. 45 (11), 1975-1982 (2004).
- Alapatt, P., et al. Liver retinol transporter and receptor for serum retinol-binding protein (RBP4). J Biol Chem. 288 (2), 1250-1265 (2013).
- Chawla, A., Repa, J. J., Evans, R. M., Mangelsdorf, D. J. Nuclear receptors and lipid physiology: Opening the X-files. Science. 294 (5548), 1866-1870 (2001).
- Heyman, R. A., et al. 9-cis retinoic acid is a high affinity ligand for the retinoid X receptor. Cell. 68 (2), 397-406 (1992).
- Allenby, G., et al. Retinoic acid receptors and retinoid X receptors: interactions with endogenous retinoic acids. Proc Natl Acad Sci USA. 90 (1), 30-34 (1993).
- Das, B. C., et al. Retinoic acid signaling pathways in development and diseases. Bioorg Med Chem. 22 (2), 673-683 (2014).
- Hernandez, R. E., Putzke, A. P., Myers, J. P., Margaretha, L., Moens, C. B. Cyp26 enzymes generate the retinoic acid response pattern necessary for hindbrain development. Development. 134 (1), 177-187 (2007).
- Yashiro, K., et al. Regulation of retinoic acid distribution is required for proximodistal patterning and outgrowth of the developing mouse limb. Dev Cell. 6 (3), 411-422 (2004).
- Duester, G. Families of retinoid dehydrogenases regulating vitamin A function. Eur J Biochem. 267 (14), 4315-4324 (2000).
- Tatum, V., Chow, C. K. Rapid measurement of retinol, retinal, 13-cis-retinoic acid and all-trans-retinoic acid by high performance liquid chromatography. J Food Drug Anal. 13 (3), (2020).
- Teerlink, T., Copper, M. P., Klaassen, I., Braakhuis, B. J. M. Simultaneous analysis of retinol, all-trans- and 13-cis-retinoic acid and 13-cis-4-oxoretinoic acid in plasma by liquid chromatography using on-column concentration after single-phase fluid extraction. J Chromatogr B. Biomed Sci App. 694 (1), 83-92 (1997).
- Egberg, D. C., Heroff, J. C., Potter, R. H. Determination of all-trans and 13-cis vitamin A in food products by high-pressure liquid chromatography. J Agric Food Chem. 25 (5), 1127-1132 (1977).
- Sudo, Y., et al. A microbial rhodopsin with a unique retinal composition shows both sensory rhodopsin II and bacteriorhodopsin-like properties. J Biol Chem. 286 (8), 5967-5976 (2011).
- Kane, M. A., Napoli, J. L. Quantification of endogenous retinoids. Methods Mol Biol. 652, 1-54 (2010).
- Landers, G. M., Olson, J. A. Rapid, simultaneous determination of isomers of retinal, retinal oxime and retinol by high-performance liquid chromatography. J Chromatogr A. 438, 383-392 (1988).
- Hubbard, R., Brown, P. K., Bownds, D. [243] Methodology of vitamin A and visual pigments. Methods Enzymol. 18, 615-653 (1971).
- Robeson, C. D., et al. Chemistry of vitamin A. XXIV. The synthesis of geometric isomers of vitamin A via methyl β-methylglutaconate1. J Am Chem Soc. 77 (15), 4111-4119 (1955).
- Robeson, C. D., Blum, W. P., Dieterle, J. M., Cawley, J. D., Baxter, J. G. Chemistry of vitamin A. XXV. Geometrical isomers of vitamin A aldehyde and an isomer of its α-ionone analog1. J Am Chem Soc. 77 (15), 4120-4125 (1955).
- Hubinger, J. C. Determination of retinol, retinyl palmitate, and retinoic acid in consumer cosmetic products. J Cosmet Sci. 60 (5), 485-500 (2009).
- Bhat, P. V., Co, H. T., Lacroix, A. Effect of 2-alkanols on the separation of geometric isomers of retinol in non-aqueous high-performance liquid chromatography. J Chromatogr A. 260, 129-136 (1983).
- Stancher, B., Zonta, F. Quantitative high-performance liquid chromatographic method for determining the isomer distribution of retinol (vitamin A1) and 3-dehydroretinol (vitamin A2) in fish oils. J Chromatogr. 312, 423-434 (1984).
- Zonta, F., Stancher, B. High-performance liquid chromatography of retinals, retinols (vitamin A1) and their dehydro homologues (vitamin A2): improvements in resolution and spectroscopic characterization of the stereoisomers. J Chromatogr A. 301, 65-75 (1984).
- van Kuijk, F. J., Handelman, G. J., Dratz, E. A. Rapid analysis of the major classes of retinoids by step gradient reversed-phase high-performance liquid chromatography using retinal (O-ethyl) oxime derivatives. J Chromatogr. 348 (1), 241-251 (1985).
- Kane, M. A., Folias, A. E., Napoli, J. L. HPLC/UV quantitation of retinal, retinol, and retinyl esters in serum and tissues. Anal Biochem. 378 (1), 71-79 (2008).
- Widjaja-Adhi, M. A. K., Ramkumar, S., von Lintig, J. Protective role of carotenoids in the visual cycle. FASEB J. 32 (11), 6305-6315 (2018).
- Ramkumar, S., Jastrzebska, B., Montenegro, D., Sparrow, J. R., von Lintig, J. Unraveling the mystery of ocular retinoid turnover: Insights from albino mice and the role of STRA6. J Biol Chem. 300 (3), 105781(2024).
- de Grip, W. J., Lugtenburg, J. Isorhodopsin: An undervalued visual pigment analog. Colorants. 1 (3), 256-279 (2022).
- Fan, J., Rohrer, B., Moiseyev, G., Ma, J., Crouch, R. K. Isorhodopsin rather than rhodopsin mediates rod function in RPE65 knock-out mice. Proc Natl Acad Sci USA. 100 (23), 13662-13667 (2003).
- Sparrow, J. R. Bisretinoids of RPE lipofuscin: Trigger for complement activation in age-related macular degeneration. Adv Exp Med Biol. 703, 63-74 (2010).
- Różanowska, M., Handzel, K., Boulton, M. E., Różanowski, B. Cytotoxicity of all-trans-retinal increases upon photodegradation. Photochem Photobiol. 88 (6), 1362-1372 (2012).
Réimpressions et autorisations
