Ce protocole décrit l’utilisation de vecteurs de virus adéno-associés (AAV) pour le marquage spécifique des cellules et l’imagerie in vivo à l’aide d’un ophtalmoscope laser à balayage confocal (CSLO). Cette méthode permet d’étudier différents types de cellules rétiniennes et leurs contributions à la fonction et à la maladie rétiniennes.
Article de méthode
Imagerie longitudinale in vivo de cellules rétiniennes avec des sérotypes viraux adéno-associés adaptés par ophtalmoscopie laser à balayage confocal
Dans cet article
Résumé
Résumé
La nature dynamique des processus cellulaires rétiniens nécessite des progrès dans l’administration de gènes et les techniques de surveillance en direct pour améliorer la compréhension et le traitement des maladies oculaires. Cette étude introduit une approche optimisée de virus adéno-associé (AAV), en utilisant des sérotypes et des promoteurs spécifiques pour obtenir une efficacité de transfection optimale dans les cellules rétiniennes ciblées, y compris les cellules ganglionnaires rétiniennes (CGR) et la glie de Müller. Tirant parti de la précision de l’ophtalmoscopie laser à balayage confocal (CSLO), ce travail présente une méthode non invasive d’imagerie in vivo qui capture l’expression longitudinale de la protéine fluorescente verte (GFP) médiée par AAV. Cette approche élimine le besoin de procédures terminales, préservant la continuité de l’observation et le bien-être du sujet. De plus, le signal GFP peut être retracé dans les CGR infectés par l’AAV le long de la voie visuelle vers le colliculus supérieur (SC) et le noyau géniculé latéral (LGN), ce qui permet une cartographie directe de la voie visuelle. Ces résultats fournissent un protocole détaillé et démontrent l’application de cet outil puissant pour des études en temps réel du comportement des cellules rétiniennes, de la pathogenèse de la maladie et de l’efficacité des interventions de thérapie génique, offrant des informations précieuses sur la rétine vivante et ses connexions.
Introduction
Étant la seule partie du système nerveux central accessible optiquement, la rétine sert de modèle précieux pour la recherche en neurosciences1. Les cellules ganglionnaires de la rétine (CGR), les neurones de sortie de la rétine qui transmettent des informations visuelles au cerveau, jouent un rôle crucial dans la fonction visuelle. Leur perte ou leur dysfonctionnement entraîne une déficience visuelle et une cécité irréversible, comme on le voit dans le glaucome et d’autres neuropathies optiques2. Les cellules gliales de Müller, les principales cellules gliales de la rétine, sont essentielles au maintien de l’homéostasie rétinienne, à la fourniture d’un soutien structurel et métabolique aux neurones, à la régulation des niveaux de neurotransmetteurs et à la contribution à la réparation et à la régénération de la rétine3. Leur dysfonctionnement est impliqué dans diverses maladies rétiniennes, notamment la rétinopathie diabétique4, la dégénérescence maculaire liée à l’âge5 et le syndrome ischémique oculaire6. Les RGC et la glie de Müller présentent des interactions étroites et une interdépendance ; Les cellules gliales de Müller fournissent un soutien essentiel aux CGR, tandis que l’activité des cellules gliales de Müller peut influencer la fonctiongliale de Müller 3,7. L’étude des CGR et de la glie de Müller est cruciale pour comprendre la fonction rétinienne et développer des traitements efficaces pour de multiples maladies rétiniennes.
Les évaluations actuelles de la recherche rétinienne utilisent principalement des techniques telles que la tomographie par cohérence optique (OCT) pour mesurer l’épaisseur de la couche de fibres nerveuses rétiniennes ou les trajectoires des faisceaux axonaux 8,9. Bien que ces méthodes soient inestimables pour détecter la perte de CGR, elles ne fournissent pas une vue détaillée de la morphologie du CGR et des cellules gliales en raison de leur résolution limitée. De même, bien que des techniques avancées telles que l’ophtalmoscopie laser à balayage d’optique adaptative (AO-SLO) permettent l’imagerie au niveau cellulaire des CGR, des photorécepteurs et des cellules gliales dans la rétine humaine vivante10, leur complexité technique et leur accessibilité limitée limitent leur utilisation principalement à des contextes de recherche spécialisés. Compte tenu de ces contraintes, il est nécessaire de développer des méthodes plus accessibles et plus fiables pour l’étude approfondie de populations spécifiques de cellules rétiniennes in vivo.
En conséquence, ce protocole vise à introduire une approche d’imagerie alternative adaptée aux applications de recherche dans les cellules rétiniennes. Il combine la puissance du marquage spécifique au type de cellule médié par AAV avec la nature non invasive de l’imagerie CSLO. Les virus adéno-associés (AAV) sont des vecteurs de libération de gènes polyvalents connus pour leur faible immunogénicité et leur capacité à transduire un large éventail de types de cellules, y compris les cellules en division et non divisées11. Cela en fait des outils idéaux pour cibler des populations cellulaires spécifiques dans l’environnement rétinien complexe. En utilisant des vecteurs AAV avec des sérotypes et des promoteurs soigneusement sélectionnés, l’expression sélective de protéines fluorescentes peut être obtenue dans plusieurs types de cellules d’intérêt, tels que les RGC et les glies de Müller. Par exemple, l’AAV2 est connu pour son efficacité de transduction plus élevée dans les RGC12,13, tandis que l’AAV8 est nettement efficace pour cibler les photorécepteurs14, et l’AAV9 démontre de fortes capacités de transfection dans la glie de Müller15, montrant une large efficacité sur diverses couches de cellules rétiniennes. Il est important de noter que l’efficacité de l’AAV dépend non seulement du choix du sérotype, mais aussi des promoteurs, qui dictent l’intensité et la spécificité cellulaire de l’expression du transgène, soulignant l’importance d’une sélection minutieuse pour obtenir une transduction optimale.
Pour le marquage RGC, ce protocole utilise AAV2 avec le promoteur de la synapsine humaine (hSyn). AAV2 présente une transduction efficace des CGR après une injection intravitréenne13, et le promoteur hSyn, un promoteur neuronal omniprésent, entraîne l’expression de transgènes forts et spécifiques dans ces cellules16. Pour la glie de Müller, le protocole utilise des vecteurs AAV9 pilotés par le promoteur GfaABC1D17, qui démontre une forte expression transgénique dans ces cellules15. Cette approche de marquage ciblée permet aux chercheurs de distinguer ces cellules du tissu rétinien environnant et de les suivre au fil du temps, fournissant ainsi une base pour la surveillance in vivo des cellules rétiniennes et de leurs réponses aux changements bioenvironnementaux.
L’ophtalmoscopie laser à balayage confocal (CSLO) est une technique d’imagerie non invasive qui fournit des images haute résolution de la rétine vivante, permettant la visualisation en temps réel des populations de cellules rétiniennes marquées par fluorescence 18,19,20. Un faisceau laser focalisé balaie la rétine, capturant la lumière émise qui passe à travers un sténopé pour éliminer les signaux flous, ce qui permet d’obtenir des images plus nettes avec un contraste amélioré. Ce protocole utilise un système CSLO Heidelberg Spectralis, qui a été largement utilisé pour l’imagerie des cellules rétiniennes chez les animaux vivants, y compris des études visualisant les RGCs21,22 et la microglie23 marqués transgéniques. En utilisant l’unité HRA CSLO avec un laser de 488 nm et des filtres appropriés, les chercheurs peuvent imager des RGC ou des glies de Müller marqués par fluorescence chez des animaux vivants après une injection intravitréenne de vecteurs AAV porteurs de gènes rapporteurs fluorescents. Le protocole d’imagerie longitudinale, avec des séances hebdomadaires couvrant à la fois la rétine centrale et périphérique, suit les changements au fil du temps. Pour donner la priorité au bien-être animal, le protocole utilise le système de suivi oculaire automatique (ART) de l’unité CSLO de la HRA, permettant une acquisition d’images précise sans avoir besoin d’anesthésie générale ou de lentilles de contact.
Ce protocole exploite la puissance combinée de l’AAV et du CSLO pour permettre la surveillance longitudinale de types spécifiques de cellules rétiniennes in vivo. En associant la spécificité du type cellulaire du marquage médié par AAV aux capacités d’imagerie non invasives et à haute résolution de CSLO, cette méthode permet aux chercheurs d’étudier les changements dynamiques dans les RGC et la glie de Müller en réponse à divers stimuli ou interventions. Ces connaissances recèlent un potentiel important pour éclairer l’élaboration de nouvelles stratégies diagnostiques et thérapeutiques pour les maladies de la rétine.
Protocole
Toutes les expériences ont été menées conformément à la déclaration de l’ARVO pour l’utilisation des animaux dans la recherche ophtalmique et visuelle et ont été approuvées par le Comité institutionnel de soin et d’utilisation des animaux de la Capital Medical University, à Pékin. Des souris C57BL/6J mâles adultes de quatre semaines (pesant entre 15 et 20 g) ont été utilisées pour toutes les expériences et logées dans des pièces à température contrôlée avec un cycle lumière/obscurité de 12/12 h. De la nourriture et de l’eau standard pour rongeurs étaient disponibles à volonté. Les détails des réactifs et de l’équipement utilisés dans cette étude sont énumérés dans la table des matériaux.
1. Transfection de cellules rétiniennes médiée par AAV
REMARQUE : Pour la transduction ciblée des CGR, ce protocole utilise AAV2-hSyn-eGFP, qui intègre le promoteur hSyn pour favoriser l’expression robuste de la GFP améliorée. La glie de Müller est ciblée à l’aide d’AAV9-GfaABC1D-eGFP. Pour obtenir une efficacité de transduction optimale et une expression robuste des transgènes, un titre AAV minimum de 1 x 10¹² génomes viraux (vg)/mL est recommandé pour les injections intravitréennes chez la souris13.
- Respectez des protocoles de sécurité stricts lors de la réalisation de procédures de transfection de cellules rétiniennes médiées par AAV afin de prévenir l’exposition accidentelle et d’assurer un environnement de travail sûr.
- Effectuer toutes les procédures impliquant des vecteurs viraux dans une enceinte de biosécurité (ESB) certifiée. Équipez le personnel d’un équipement de protection individuelle (EPI) approprié, y compris des blouses de laboratoire, des gants et des lunettes de protection, pendant toute la durée de l’intervention.
- Éliminer correctement tous les objets tranchants et les matières à risque biologique conformément aux protocoles de sécurité de l’établissement afin de maintenir la conformité et de protéger tout le personnel du laboratoire.
2. Préparation des vecteurs viraux et des animaux
- Obtenez les vecteurs AAV2-hSyn-eGFP ou AAV9-GfaABC1D-eGFP stockés à -80 °C. Décongeler les vecteurs sur de la glace immédiatement avant de les utiliser afin de préserver l’intégrité virale.
- Anesthésier les souris avec une injection intrapéritonéale de pentobarbital sodique à une dose de 50 mg/kg. Confirmez la profondeur de l’anesthésie en testant les réflexes arrière du pied avant d’autres actions.
- Coupez les moustaches pour éviter d’interférer avec la zone chirurgicale pendant la procédure. Désinfectez l’orbite avec une solution de povidone iodée à 20 % pendant 2 s, puis rincez abondamment avec une solution saline normale stérile.
- Appliquez localement une goutte de proparacaïne à 0,5 % pour minimiser l’inconfort et prévenir les mouvements oculaires involontaires.
3. Manipulation et injection intravitréenne de vecteurs viraux
- Transférez 1 μL de la solution AAV sélectionnée (soit AAV2-hSyn-eGFP ou AAV9-GfaABC1D-eGFP) dans un morceau de film de paraffine propre et pré-refroidi pour éviter les fluctuations de température qui pourraient affecter l’activité virale.
- Aspirer la solution AAV à l’aide d’une seringue en verre Hamilton avec une aiguille biseautée de 33 G sous le microscope chirurgical ophtalmique.
- Placez la souris en position couchée ventrale sous le microscope. Inclinez légèrement la tête pour élever le côté oculaire destiné à l’injection. Ajustez et optimisez le grossissement du microscope pour identifier clairement la région supérieure de l’orbite de la souris.
- Insérez l’aiguille de 1 à 2 mm en arrière du limbe au niveau du bord scléral supérieur de l’œil dans la cavité vitrée. Injectez lentement les solutions AAV pour éviter les refoulements ou les dommages induits par la pression.
REMARQUE : Emplacement du site d’injection : Effectuez l’injection dans le quadrant temporal supérieur de l’œil, à environ 1 mm en arrière du limbe. Choisissez cet emplacement pour éviter les vaisseaux sanguins majeurs et minimiser le risque d’endommager le cristallin. Évitez les sites d’injection trop proches du limbe pour éviter la pénétration de l’iris ou l’abrasion du cristallin. Éviter la vascularisation : Utilisez un microscope opératoire pour examiner soigneusement le site d’injection prévu pour les vaisseaux sanguins visibles avant l’injection. S’il y a des navires, ajustez légèrement le point d’entrée pour les éviter. Insérez l’aiguille à un angle peu profond, parallèle à l’iris, pour réduire davantage le risque de lésions vasculaires. Évitez les injections répétées dans la même zone pour réduire le risque d’hémorragie sous-rétinienne. - Maintenez l’aiguille en place pendant 30 secondes pour permettre aux vecteurs de se disperser dans la chambre vitrée et de se fixer sur la surface rétinienne, maximisant ainsi les chances de réussite de la transduction.
- Retirez l’aiguille lentement pour minimiser le risque de reflux vitréen.
- Appliquez une pommade antibiotique topique sur le site d’injection immédiatement après l’injection. Assurez-vous que la pommade est appliquée uniformément pour couvrir entièrement la surface oculaire, évitant ainsi l’infection oculaire et l’inflammation.
REMARQUE : La pommade antibiotique contient 1 mg / g de dexaméthasone, 3500 UI / g de sulfate de néomycine et 6000 UI / g de sulfate de polymyxine B. - Placez la souris sur un coussin chauffant pour maintenir la température corporelle pendant la récupération de l’anesthésie, et surveillez-la de près pour détecter tout signe de détresse ou d’anomalie. Une fois qu’ils sont complètement rétablis et qu’ils ne présentent aucune complication, retournez-les dans leurs cages avec un accès à de la nourriture et à de l’eau normales.
4. Imagerie in vivo avec CSLO
- Préparation des animaux
- Sélectionnez la souris infectée par AAV2-hSyn-eGFP ou AAV9-GfaABC1D-eGFP après 4 semaines d’injection intravitréenne. Appliquer une goutte d’une solution pour les yeux contenant 0,5 % de tropicamide et 0,5 % de phényléphrine à la surface de l’œil pour dilater la pupille à environ 2 mm de diamètre22.
REMARQUE : Un intervalle de temps de transduction AAV d’au moins 4 semaines est recommandé pour le marquage fluorescent optimal des cellules rétiniennes après l’injection intravitréenne13. De plus, dans nos expériences d’écrasement du nerf optique (ONC), les rétines ont été imagées 4 semaines après l’infection, ainsi que les jours 7 et 14 après la blessure par écrasement. Ces points temporels ont été choisis pour capturer à la fois l’expression initiale de l’AAV et la progression des changements rétiniens après ONC. - Couvrez la plate-forme d’imagerie avec un morceau du tampon propre pour éviter la contamination possible des excréments animaux pendant le processus d’opération.
REMARQUE : La plate-forme d’imagerie sur mesure offre suffisamment d’espace pour que l’animal puisse s’allonger sur le ventre, assurant la stabilité et minimisant les mouvements pendant la contention manuelle pour une acquisition d’image optimale. - Transférez soigneusement la souris sur la plate-forme d’imagerie et prévoyez une période d’acclimatation de 2 à 5 minutes avant l’imagerie afin de minimiser le stress et de faciliter l’adaptation à l’environnement d’imagerie.
- Avec l’aide d’un deuxième technicien, immobilisez doucement l’animal tout en maintenant un état conscient tout au long de la procédure. Prévoyez un intervalle de repos de 10 secondes après 15 s d’imagerie pour permettre le clignement des yeux et maintenir l’humidité de la cornée.
REMARQUE : Frottez doucement la peau du cuir chevelu pour induire un soulèvement spontané des paupières, en évitant l’utilisation d’une contention forcée des paupières ou de dispositifs supplémentaires tels que des clips, réduisant ainsi le risque de blessure aux yeux. L’anesthésie générale n’est pas utilisée pour préserver la clarté optique pendant les séances d’imagerie prolongées, car elle peut exacerber l’opacité transitoire du cristallin. Trouvez un équilibre entre l’acquisition d’images de haute qualité et le confort et la sécurité des animaux tout au long de la procédure. Complétez l’ensemble de la procédure en 5 min pour assurer le bien-être de l’animal et maintenir la qualité de l’imagerie. - Ajustez la posture de la tête et alignez l’objectif de la caméra en ajustant avec précision le bouton de mise au point (Figure 1B) et le micromanipulateur (Figure 1C) pour viser la région d’intérêt (ROI) pour l’imagerie in vivo ultérieure.
- Sélectionnez la souris infectée par AAV2-hSyn-eGFP ou AAV9-GfaABC1D-eGFP après 4 semaines d’injection intravitréenne. Appliquer une goutte d’une solution pour les yeux contenant 0,5 % de tropicamide et 0,5 % de phényléphrine à la surface de l’œil pour dilater la pupille à environ 2 mm de diamètre22.
- Configuration du système
- Fixez un objectif grand angle de 55° sans contact sur l’appareil photo pour élargir le champ de vision de la zone du fond d’œil.
- Réglez la roue à filtres sur la position A (angiographie) pour permettre l’acquisition des modes d’imagerie infrarouge (IR) et fluorescente (FA) (Figure 1A). Allumez le laser et l’alimentation pour activer le système d’imagerie CSLO.
- Ouvrez le logiciel Heidelberg Eye Explorer et créez un nouvel examen en cliquant sur l’icône Nouveau patient en haut de la barre de menu. Entrez les informations pertinentes sur l’animal et acceptez la courbure cornéenne par défaut de 7,7 mm dans la fenêtre contextuelle.
- Sélectionnez le bouton jaune Démarrer (Figure 1E) sur l’écran du panneau de commande pour lancer le mode d’imagerie en direct.
- Imagerie CSLO in vivo
- Sélectionnez le mode IR (Figure 1G) avec autofluorescence à une longueur d’onde d’excitation de 820 nm sur le panneau de commande. Pour obtenir une imagerie haute résolution, la technologie High Res. Le mode (HR) est activé via l’interface de la fenêtre ou le panneau de commande manuel (Figure 1F).
REMARQUE : L’imagerie par réflectance infrarouge (IR) est généralement la première étape de l’imagerie ophtalmique CLSO, acquise avant l’angiographie à la fluorescéine (AF), pour fournir une vue de base. Un éclairage uniforme, des artefacts minimaux et une mise au point nette sur les principaux vaisseaux rétiniens sont essentiels pour la fiabilité de la mise au point dans le plan z et l’obtention d’images IR de haute qualité. - Déplacez l’objectif vers l’œil de la souris à l’aide du joystick avec le micromanipulateur XYZ pour un réglage fin. Examinez la transparence optique et tournez le bouton de sensibilité (Figure 1D) dans le sens inverse des aiguilles d’une montre pour réduire la luminosité de l’image du fond d’œil à 40 % à 60 %, évitant ainsi la surexposition du fond d’œil et améliorant la visualisation des détails rétiniens.
- Ajustez le bouton de mise au point et le micromanipulateur jusqu’à ce que le disque optique et les vaisseaux rétiniens soient identifiés sans ambiguïté sur le fond d’œil.
REMARQUE : Critères du plan focal optimal : (1) Vue du fond d’œil uniformément éclairée sans coins sombres. (2) Éclairage en uniforme entourant le disque optique sans taches sombres focales ni distorsion. (3) Forme claire de la lumière des gros vaisseaux rétiniens avec le mouvement visible du flux sanguin. - Passez en mode FA (Figure 1H) avec un laser bleu à semi-conducteurs à une longueur d’onde d’excitation de 488 nm et un filtre barrière à 500 nm. Tournez le bouton de sensibilité (Figure 1D) dans le sens des aiguilles d’une montre pour augmenter la luminosité de l’image du fond d’œil de 50 % à 107 % afin d’éclairer la zone rétinienne ciblée.
- Réglez la valeur moyenne de l’ART (une barre bleue en bas à gauche de l’interface du logiciel) à au moins 15 pour améliorer le rapport signal/bruit. Cette fonction calcule la moyenne d’une série de B-scans acquis au même endroit, ce qui améliore la qualité de l’image.
REMARQUE : Bien qu’une valeur de moyenne ART plus élevée améliore généralement la qualité de l’image grâce au calcul de la moyenne, elle prolonge également la durée de balayage. Cette durée prolongée pourrait potentiellement augmenter le risque de déshydratation de la cornée et de fatigue chez l’animal, facteurs qui doivent être soigneusement pris en compte, en particulier lors de l’imagerie animale éveillée. - Se réaligner sur le plan interne de la rétine, en ciblant spécifiquement les CGR exprimant la GFP ou les cellules gliales de Müller. Des réglages fins sont effectués pour assurer un éclairage précis de la population cellulaire souhaitée, telle que le soma et les axones RGC, ou le corps cellulaire de Müller. La sensibilité d’imagerie est équilibrée pour obtenir une visualisation optimale et éviter la sursaturation des cellules GFP positives.
REMARQUE : Pour obtenir des images avec une clarté et une luminosité comparables du signal GFP, l’acquisition de sensibilité doit être constante pour toutes les souris de l’expérience. - Appuyez sur le bouton de sensibilité (Figure 1D) pour lancer le mode ART, qui génère une image moyenne en direct en ligne. Attendez que la barre bleue (représentant la valeur moyenne ART) en bas à gauche de l’interface logicielle ait atteint la valeur ART définie (≥ 20 images) et appuyez sur le bouton Acquérir de l’interface de contrôle pour capturer les images du fond d’œil.
REMARQUE : Pour le mode ART, le suivi oculaire est intégré pour compenser automatiquement les mouvements oculaires mineurs pendant l’imagerie in vivo , permettant une mise au point cohérente sur le plan focal rétinien sélectionné. - Une fois les images souhaitées obtenues, quittez le mode ART en appuyant sur le bouton de sensibilité de l’écran tactile.
REMARQUE : Pour éviter le dessèchement de la cornée et permettre le clignement spontané des yeux, des pauses de 10 s ont été mises en place toutes les 15 s pendant le processus d’imagerie. - Pour naviguer dans les zones nasale et temporale de la rétine, déplacez la tête de la caméra horizontalement tout en observant l’image en direct à l’écran. Une fois la région cible atteinte, affinez la mise au point et démarrez le processus d’imagerie comme décrit aux étapes 2.3.1 à 2.3.8.
REMARQUE : Maintenez des mouvements de caméra lents et contrôlés tout en assurant un éclairage constant et lumineux du fond d’œil. Si des zones sombres apparaissent, utilisez le micromanipulateur pour ajuster la position de la caméra verticalement et recentrer la rétine. - Pour obtenir une image de la rétine supérieure, ajustez doucement la position de la tête de la souris sur le dos. Inclinez modérément la tête de la caméra vers le haut pour l’aligner avec la région rétinienne supérieure. Réajustez la mise au point si nécessaire et procédez à l’imagerie.
- Une fois l’imagerie terminée, toutes les régions rétiniennes souhaitées quittent la fenêtre d’acquisition et les images sont automatiquement enregistrées. Appliquez un lubrifiant topique sur l’œil imagé pour maintenir l’hydratation de la cornée.
- Pour amorcer l’examen de l’œil controlatéral, repositionnez l’animal du côté opposé de la plate-forme et répétez les étapes 2.3.1 à 2.3.11.
- Sélectionnez le mode IR (Figure 1G) avec autofluorescence à une longueur d’onde d’excitation de 820 nm sur le panneau de commande. Pour obtenir une imagerie haute résolution, la technologie High Res. Le mode (HR) est activé via l’interface de la fenêtre ou le panneau de commande manuel (Figure 1F).
5. Traitement et analyse d’images
- Exportation et préparation d’images
- Ouvrez le logiciel Heidelberg Eye Explorer et sélectionnez la séance d’imagerie CSLO souhaitée de bonne qualité. Choisissez des images uniques ou consécutives du même emplacement rétinien avec des paramètres de sensibilité cohérents dans le temps.
- Excluez les images floues avec une mauvaise mise au point ou une mauvaise clarté cornéenne, en veillant à ce que seules les images avec une visualisation claire des structures rétiniennes soient utilisées pour l’analyse. Exportez ces images au format TIFF pour un traitement ultérieur.
- Alignement et recadrage de l’image
- Regroupez les images par œil de souris en fonction de la même région rétinienne.
REMARQUE : Les images originales acquises à partir du système CSLO sont enregistrées au format suivant : TIFF, avec une dimension de 1536 x 1536 pixels, une résolution de 5,69 um/pixel et une valeur ART de ≥15. - Pour les examens de suivi, importez les images dans un logiciel de traitement d’images approprié. Faites pivoter et alignez les images si nécessaire pour qu’elles correspondent à l’orientation de l’image de base. Lors de l’enregistrement ou de l’exportation des images traitées, utilisez des paramètres qui maintiennent la meilleure qualité d’image possible afin de minimiser les artefacts de compression potentiels.
- Alignez les images CSLO à partir d’une série chronologique du même œil en les faisant pivoter pour correspondre à l’image de base respective en utilisant le système vasculaire et le disque optique comme points de repère.
REMARQUE : Examinez attentivement chaque image alignée et, avant de procéder au recadrage, assurez-vous qu’elles répondent aux critères suivants : (1) Capture complète de la région rétinienne : L’image doit englober entièrement la région rétinienne d’intérêt prévue, y compris les points de repère clés tels que le disque optique et les principaux vaisseaux sanguins ; (2) Absence d’artefacts de mouvement : L’image doit être exempte de flou, de traînée ou de duplication des structures causée par le mouvement oculaire pendant l’imagerie ; (3) Distorsion minimale : L’image doit représenter avec précision la structure rétinienne sans déformation, étirement ou effet de compression qui pourraient résulter des angles d’imagerie ou des effets de lentille. (4) Équilibre des mesures de qualité d’image : Évaluations des niveaux de bruit de fond (écart-type des intensités de pixels dans les zones sans structure < 5 (échelle de 0 à 255)) ; rapport signal/bruit (SNR >20), cohérence de l’éclairage (coefficient de variation entre six quadrants d’image <10 %) et uniformité de l’image (coefficient de variation dans les régions homogènes <15 %). - Sélectionnez l’image pivotée et exportez-la au format TIFF. Pour chaque point temporel, utilisez l’outil de recadrage pour sélectionner et recadrer au hasard 5 à 10 zones (300 x 300 pixels chacune) contenant des cellules GFP positives à partir des images dont la qualité est approuvée. Exportez chaque image recadrée individuellement au format TIFF pour une analyse plus approfondie.
- Regroupez les images par œil de souris en fonction de la même région rétinienne.
- Mesure de l’intensité de fluorescence
- Ouvrez les images CSLO recadrées (niveaux de gris 8 bits, 300 x 300 pixels) dans ImageJ/Fiji.
- Pour examiner les changements globaux des signaux fluorescents, mesurez l’intensité totale de fluorescence par image recadrée à l’aide de l’option Analyser > mesurer (ou Ctrl + M). Enregistrez la valeur « Moyenne », qui représente l’intensité moyenne de fluorescence GFP de l’ensemble de l’image recadrée.
- Quantification RGC
- Dans ImageJ/Fiji, ajustez le seuil d’intensité des images CSLO recadrées à l’aide de l’option Ajuster > luminosité/contraste > pour obtenir une visualisation optimale des corps blancs individuels sur fond noir.
REMARQUE : Déterminez un seuil individualisé après avoir examiné le lot d’images recadrées, ou appliquez un algorithme de seuillage cohérent (par exemple, la méthode5 de Huang dans ImageJ/Fiji). Pour la méthode de Huang : (1) Convertissez les images en niveaux de gris 8 bits (type > image > 8 bits). (2) Accédez à l’outil de seuillage (Image > Ajuster > seuil). (3) Sélectionnez Huang comme méthode de seuillage. (4) Prévisualisez la segmentation et cliquez sur Appliquer. Le seuil sera automatiquement calculé et affiché sur l’histogramme de l’image. - Activez le plugin Cell Counter et cliquez sur chaque soma RGC GFP-positif pour compter. Enregistrez le nombre total de cellules marquées dans la région analysée. Répétez ce processus pour toutes les images recadrées à partir de chaque point de suivi dans le temps.
- Dans ImageJ/Fiji, ajustez le seuil d’intensité des images CSLO recadrées à l’aide de l’option Ajuster > luminosité/contraste > pour obtenir une visualisation optimale des corps blancs individuels sur fond noir.
- Analyse des données
- Exportez les données de numération cellulaire et d’intensité de fluorescence vers un tableur ou un logiciel statistique (par exemple, GraphPad Prism).
- Effectuer des tests statistiques appropriés sur la base du plan d’expérience et des hypothèses correspondants. Interprétez les résultats et concluez.
Résultats
Selon le protocole présenté, différentes cellules rétiniennes ont été visualisées et suivies in vivo à l’aide d’une combinaison d’administration de gènes médiée par AAV et de CSLO. AAV2-hSyn-eGFP a efficacement transduit les CGR, ce qui a entraîné une expression robuste de l’eGFP dans toute la rétine, comme le confirme le CSLO et la colocalisation avec le marqueur spécifique du RGC, la protéine de liaison à l’ARN avec épissage multiple (RBPMS), spécifiquement trouvée dans la couche cellulaire ganglionnaire (Figure 2 et Figure 3). Le protocole a également confirmé la capacité de cibler la glie de Müller à l’aide d’AAV9-GfaABC1D-eGFP. La visualisation CSLO a révélé une expression généralisée de l’eGFP, en particulier dans les couches internes de la rétine, ce qui correspond au segment de distribution majeur connu de la glie de Müller. Le signal positif à la GFP est également fortement colocalisé avec le marqueur glial de Müller, la glutamine synthétase (GS), confirmant ainsi la spécificité de cette approche (Figure 2E, F et Figure 3B). Ces résultats ont réaffirmé la polyvalence de l’administration de gènes assistée par AAV pour l’étude de différents types de cellules rétiniennes. Pour confirmer la capacité à cibler la glie de Müller, AAV9-GfaABC1D-eGFP a été utilisé. L’imagerie CSLO a révélé une expression généralisée de l’eGFP, en particulier dans les couches internes de la rétine, ce qui correspond à la distribution connue de la glie de Müller (Figure 2E, F). Ce modèle d’expression sélective a été validé par le haut degré de colocalisation observé entre le signal GFP et le marqueur gliale de Müller, la glutamine synthétase (GS) (Figure 3B).
Pour quantifier la spécificité et l’efficacité de l’approche de ciblage viral pour les CGR et la glie de Müller, une analyse de colocalisation a été réalisée pour comparer la fluorescence de la GFP avec les marqueurs de type cellulaire standard (Figure 3B,D). Au total, 6 yeux de souris ont été analysés. Pour les CGR ciblés par AAV2-hSyn-GFP, l’efficacité de la transduction était de 64 % ± 3 %, tandis que la spécificité de la transduction était de 68 % ± 3 %. Pour les cellules gliales de Müller ciblées avec AAV9-GfaABC1D-GFP, l’efficacité de transduction était de 58 % ± 2 %, et la spécificité de transduction était de 71 % ± 2 %. Ces résultats démontrent que cette approche d’administration de gènes médiée par AAV permet le marquage sélectif de types de cellules rétiniennes distincts, soulignant sa polyvalence pour l’étude des processus cellulaires et moléculaires dans la rétine.
Afin d’évaluer l’adéquation de CSLO pour la surveillance longitudinale des perturbations des cellules rétiniennes, un modèle ONC transitoire a été réalisé chez des souris infectées par AAV2-hSyn-eGFP. Une baisse progressive du signal eGFP et du nombre de RGC a été observée sur deux semaines (Figure 4). La survie au CGR a été quantifiée à l’aide de trois paramètres : l’intensité de la fluorescence du CSLO, le nombre de cellules in vivo pour les images CSLO et le nombre ex vivo du RGC des cellules RBPMS positives. Après le traitement de l’image décrit à l’étape 4, au moins 10 régions d’intérêt (ROI) ont été recadrées de chaque rétine (6 yeux au total), ce qui a permis de s’assurer que chaque ROI englobait le même emplacement rétinien et présentait des signaux cellulaires clairs à chaque point temporel. L’intensité de fluorescence CSLO a ensuite été quantifiée en mesurant l’intensité moyenne dans chaque retour sur investissement cultivé à chaque point temporel. In vivo, le comptage cellulaire a été obtenu en comptant manuellement les CGR individuels positifs à la GFP dans le même retour sur investissement cultivé à chaque point temporel. Enfin, les rétines ont été prélevées pour l’immunomarquage RBPMS, et les cellules RBPMS positives ont été comptées dans 24 zones définies imagées par secteur rétinien pour chaque rétine. Des corrélations négatives significatives ont été observées entre les trois paramètres de survie du CGR (intensité de la fluorescence du CSLO, numération cellulaire in vivo et numération cellulaire positive ex vivo des RBPMS) et le temps post-ONC (p < 0,001 pour tous, figure 4C), démontrant une perte et une dégénérescence progressives du CGR. Il est important de noter qu’aucune différence significative n’a été observée entre les différents groupes expérimentaux en termes de densité initiale de CGR ou de taux de déclin, ce qui indique une cohérence grossière dans le modèle ONC et l’approche d’imagerie. Ces résultats sont cohérents avec les études antérieures sur les dommages du CGR après ONC et valident l’efficacité de ce protocole basé sur le CSLO en tant qu’outil non invasif et fiable pour surveiller la santé du CGR.
Pour étudier plus en détail les projections axonales du CGR dans la voie visuelle, une approche de double marquage a été utilisée avec la combinaison du marquage eGFP médié par l’AAV et du traceur antérograde de la toxine cholérique B (CTB)24. Les souris ont reçu une injection intravitréenne de CTB et ont été sacrifiées 2 jours plus tard pour une analyse histologique. La colocalisation des signaux eGFP et CTB dans les nerfs optiques a confirmé le tracé positif des axones RGC (Figure 5A). Pour étudier plus en détail les changements de signaux après une lésion axonale, des souris ont été soumises à un écrasement unilatéral du nerf optique (ONC), un modèle de lésion aiguë du RGC25. Brièvement, les souris ont été anesthésiées, et un nerf optique a été exposé et écrasé à environ 1 mm derrière le globe à l’aide de fines pinces pendant 5 secondes, induisant une axotomie RGC significative et une dégénérescence ultérieure. À la suite d’une lésion ONC, une réduction marquée de l’intensité de l’eGFP et de la CTB a été observée, indiquant une perte substantielle de fibres nerveuses et une perturbation du transport axonal. Une analyse plus approfondie des coupes cérébrales a révélé des projections RGC vers le colliculus supérieur (SC), une structure du mésencéphale impliquée dans l’intégration sensorimotrice et les mouvements oculaires, et le noyau géniculé latéral (LGN), le principal centre de relais de l’information visuelle vers le cortex visuel. Après ONC, une diminution de l’intensité de la GFP a été révélée du côté controlatéral de la lésion (Figure 5B-E). Ces résultats démontrent l’utilité de cette méthode pour étudier la dégénérescence axonale des CGR et cartographier leurs modèles de projection in vivo, offrant ainsi une alternative potentielle aux méthodes de traçage invasives traditionnelles.

Figure 1 : Système d’imagerie de l’ophtalmoscope laser à balayage confocal (CSLO) et interface du panneau de commande pour l’imagerie rétinienne en direct. (A-D) Composants du système d’imagerie : Ces images représentent les composants clés de l’appareil HRA CSLO. (A) Le levier du filtre est réglé sur la position « A » pour l’imagerie combinée de réflectance infrarouge (IR) et d’angiographie à la fluorescéine (FA). (B) Le bouton de mise au point ajuste la mise au point fine de l’objectif. (C) Le micromanipulateur permet un positionnement, un alignement et un éclairage précis du faisceau lumineux vers la rétine grâce à plusieurs degrés de liberté (par exemple, axes X, Y, Z) et de rotation. (D) Le bouton de sensibilité contrôle la luminosité des images IR et FA en ajustant l’amplification du signal lumineux détecté. En appuyant sur le bouton, vous lancez le calcul de la moyenne de l’image, qui combine plusieurs images pour réduire le bruit et améliorer le rapport signal/bruit. (E-H) Interface du panneau de configuration : les captures d’écran affichent le panneau de configuration CSLO avec les paramètres utilisés pour l’acquisition et la visualisation des images en direct. (E) Le panneau de commande d’acquisition est lancé. (F) Le mode haute résolution est recommandé pour une qualité d’image optimale. (G) Les paramètres d’imagerie IR sont mis en évidence, ce qui permet de visualiser les structures rétiniennes et les vaisseaux sanguins. (H) Les paramètres d’imagerie FA affichent des options pour l’imagerie de fluorescence monopoint et multipoint, permettant la détection de signaux fluorescents dans les cellules rétiniennes. Veuillez cliquer ici pour voir une version agrandie de cette figure.

Figure 2 : Imagerie CSLO in vivo de cellules rétiniennes marquées par fluorescence après transfection d’AAV chez des souris C57. (A) La chronologie expérimentale de l’imagerie longitudinale assistée par CSLO après transfection de l’AAV dans l’œil de la souris. (B) Images CSLO représentatives des régions supérieures et centrales de la rétine d’une souris C57 après 4 semaines d’expression d’AAV2-hSyn-eGFP. Barre d’échelle : 500 μm. (C) Un montage rétinien cousu manuellement à partir de (B) met en évidence la distribution des cellules rétiniennes exprimant l’eGFP. Barre d’échelle : 500 μm. (D) Une image CSLO agrandie de la zone caissonnée en (C) et l’image de microscopie confocale correspondante d’un flatmount rétinien. La colocalisation de l’eGFP (vert) avec le marqueur RGC RBPMS (rouge) confirme l’expression médiée par l’AAV dans les cellules ganglionnaires rétiniennes (exemples encerclés). Barre d’échelle : 50 μm. (E) Un montage assemblé manuellement d’une rétine de souris C57 4 semaines après l’injection d’AAV9-GfaABC1D-eGFP, démontrant l’expression de l’eGFP spécifique de la glie de Müller. Barre d’échelle : 500 μm. (F) Une image CSLO agrandie de la zone encadrée en (E) et l’image de microscopie confocale correspondante d’un flatmount rétinien. La colocalisation de l’eGFP (vert) avec le marqueur glial de Müller, glutamine synthétase (GS, rouge), confirme l’expression médiée par l’AAV dans les cellules gliales de Müller (exemples encerclés). Barre d’échelle : 50 μm. Veuillez cliquer ici pour voir une version agrandie de cette figure.

Figure 3 : Spécificité du type cellulaire de l’administration de gènes médiés par AAV dans la rétine de souris. (A) Immunohistochimie d’une coupe rétinienne et d’un flatmount de souris C57 après 4 semaines d’infection par AAV2-hSyn-eGFP. La colocalisation de la GFP (vert) avec la RBPMS (rouge) confirme l’expression spécifique de la RGC. Barre d’échelle : 50 μm. (B) Quantification de l’efficacité et de la spécificité de la transduction AAV2-hSyn-GFP dans les CGR. L’efficacité est représentée par le pourcentage de CGR positifs pour les RBPMS qui expriment également la GFP dans le flatmount rétinien. La spécificité est représentée par le pourcentage de cellules GFP-positives qui sont également positives pour les RBPMS dans la section rétinienne (n = 6 yeux de 4 souris). (C) Coloration par immunofluorescence d’une coupe rétinienne et d’un flatmount de souris C57 après 4 semaines d’infection par AAV9-GfaABC1D-eGFP. La colocalisation de la GFP (vert) avec la GS (rouge) confirme l’expression spécifique de la glie de Müller. Barre d’échelle : 50 μm. (D) Quantification de l’efficacité et de la spécificité de la transduction AAV9-GfaABC1D-GFP dans la glie de Müller. L’efficacité est représentée par le pourcentage de glies de Müller GS positives qui expriment également la GFP dans le flatmount rétinien. La spécificité est représentée par le pourcentage de cellules GFP positives qui sont également positives pour la GS dans la section rétinienne (n = 6 yeux de 3 souris). Veuillez cliquer ici pour voir une version agrandie de cette figure.

Figure 4 : Surveillance longitudinale CSLO de la survie du RGC après un écrasement aigu du nerf optique (ONC) chez les souris AAV2-hSyn-eGFP. (A) Un schéma de principe de la chronologie expérimentale des lésions aiguës du nerf optique après une infection par AAV. (B) Imagerie CSLO longitudinale de la même rétine chez une souris AAV2-hSyn-eGFP au départ, 7 jours et 14 jours après l’ONC, visualisant les RGC exprimant des signaux GFP. Des images agrandies des zones encadrées sont montrées à droite, ainsi que des images de microscopie confocale représentatives de platmontages rétiniens démontrant la morphologie et la distribution du RGC. Barres d’échelle : 100 μm. (C) La quantification de la survie du CGR sur deux semaines après l’ONC a été évaluée en mesurant la variation en pourcentage du nombre de cellules et de l’intensité de la fluorescence CSLO par rapport à la ligne de base (moyenne ± MEB). Aucune différence significative n’a été observée entre les groupes à chaque point temporel (ANOVA à un facteur). L’analyse de régression linéaire a révélé des corrélations négatives significatives entre le temps après la blessure et les paramètres de survie du CGR basés sur la fluorescence de la GFP (r² = 0,945, p < 0,001), la coloration RBPMS (r² = 0,888, p < 0,001), le nombre de cellules CSLO (r² = 0,511, p < 0,001) et l’intensité de la fluorescence du CSLO (r² = 0,7486, p < 0,001). n = 6 souris/groupe/point temporel. Veuillez cliquer ici pour voir une version agrandie de cette figure.
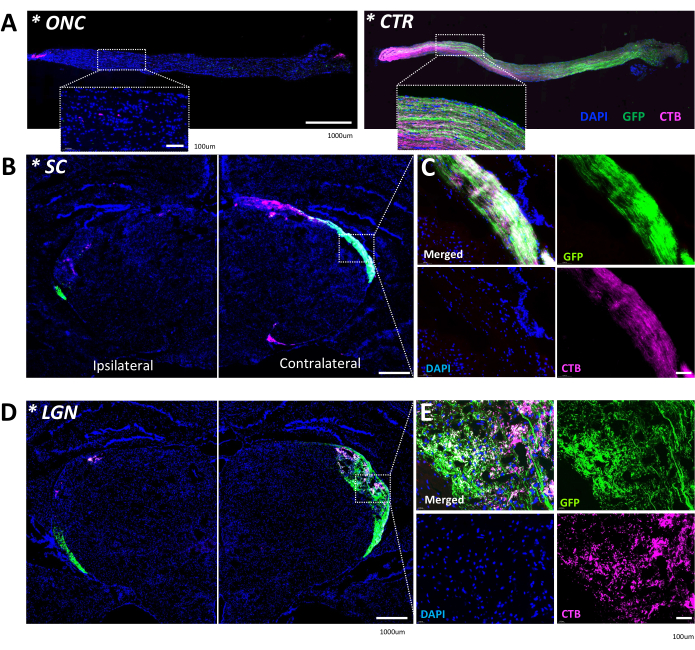
Figure 5 : Cartographie assistée par AAV des projections axonales RGC le long de la voie visuelle. (A) Images représentatives en microscopie à fluorescence d’une paire de nerfs optiques d’une souris AAV2-hSyn-eGFP, mettant en évidence des axones RGC marqués à la GFP (vert) et une colocalisation avec le traceur axonal antérograde de la toxine cholérique B (CTB, magenta). Le panneau supérieur offre une vue d’ensemble de l’ensemble des nerfs optiques (barre d’échelle : 1000 μm), tandis que le panneau inférieur offre des vues agrandies des régions encadrées (barre d’échelle : 100 μm). Deux semaines après la lésion de l’ONC, les signaux GFP et CTB montrent une réduction marquée dans tout le nerf optique (côté gauche), indiquant une perte axonale RGC et une perturbation le long de la voie visuelle. (B) Projections axonales RGC vers le colliculus supérieur (SC). Des coupes cérébrales coronales d’une souris AAV2-hSyn-eGFP 2 semaines après l’ONC mettent en évidence des axones RGC marqués à la GFP (vert) et une coloration CTB (magenta) dans le SC. Gauche (L) : SC controlatéral ; Droite (R) : SC ipsilatéral (côté blessé à l’ONC). Barre d’échelle : 1000 μm. (C) Une vue agrandie de la région encadrée en (B) démontre la colocalisation des signaux GFP et CTB (image fusionnée), mettant en évidence les faisceaux axonaux RGC et leurs motifs de projection dans le SC. Barre d’échelle : 100 μm. (D) Projections axonales RGC vers le noyau géniculé latéral (LGN) suivant ONC, révélant les axones RGC marqués à la GFP (vert) et la coloration CTB (magenta) dans le LGN. Gauche (L) : LGN controlatéral ; Droite (R) : LGN ipsilatéral (côté blessé à l’ONC). Barre d’échelle : 1000 μm. (E) Une vue agrandie de la région encadrée en (D) met en évidence les faisceaux axonaux RGC et leurs modèles de projection dans le LGN. Barre d’échelle : 100 μm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Discussion
Le protocole présenté détaille une méthode robuste et accessible pour la surveillance in vivo de populations spécifiques de cellules rétiniennes, exploitant la puissance de l’administration de gènes médiée par AAV et de l’imagerie CSLO. Cette approche offre plusieurs avantages par rapport aux méthodes traditionnelles, facilitant les études longitudinales de la dynamique des cellules rétiniennes et de leurs réponses à une lésion ou à une maladie dans des conditions physiologiques ou pathologiques.
Le succès de cette méthode repose sur plusieurs étapes critiques. Tout d’abord, l’obtention d’une efficacité optimale de transduction AAV est essentielle pour une expression robuste et spécifique du rapporteur fluorescent dans la population cellulaire cible. Cela peut être influencé par des facteurs tels que la sélection du sérotype AAV, le titre viral et la technique d’injection 13,15,16. Deuxièmement, une manipulation et une contention appropriées des animaux pendant l’imagerie CSLO sont essentielles pour minimiser les artefacts de mouvement et maintenir la qualité de l’image. L’utilisation d’une plate-forme d’imagerie sur mesure et l’évitement de l’anesthésie générale contribuent à obtenir une visualisation claire et cohérente des structures rétiniennes. Troisièmement, une optimisation minutieuse des paramètres d’imagerie CSLO, y compris les paramètres de mise au point, de sensibilité et de moyenne, est nécessaire pour obtenir des images haute résolution avec un bruit minimal et un rapport signal/bruit optimal26. Enfin, pour remédier aux limites potentielles et assurer la fiabilité des données, nous avons mis en œuvre des mesures strictes de contrôle de la qualité des images et augmenté le nombre d’animaux dans la conception de notre étude.
Le système Spectralis HRA CSLO est doté d’un suivi oculaire automatique qui améliore l’imagerie longitudinale clinique. Sa fonction de suivi automatique en temps réel (ART) peut se verrouiller sur une zone rétinienne spécifique pendant l’imagerie, réduisant ainsi les artefacts de mouvement. Pour l’imagerie clinique humaine, le système comprend également un algorithme pour le suivi à long terme de la même position anatomique de la rétine27. Cependant, ces technologies ne sont pas optimisées pour les études sur les rongeurs en raison des différences anatomiques importantes entre les yeux humains et les yeux des rongeurs. Les yeux des rongeurs sont beaucoup plus petits (3 à 4 mm de diamètre contre 24 mm chez l’homme) et ne disposent pas de certains points de repère comme la macula, ce qui présente des défis uniques pour le suivi automatisé28. Par conséquent, les chercheurs qui étudient des modèles de rongeurs s’appuient principalement sur des méthodes manuelles, en utilisant des repères anatomiques tels que les motifs des vaisseaux et la tête du nerf optique pour localiser des régions rétiniennes spécifiques et maintenir des plans d’imagerie cohérents tout au long des sessions13,22. Cette approche est nécessaire non seulement en raison du nombre limité de points de repère dans les yeux des rongeurs, mais aussi en raison des changements rétiniens substantiels potentiels induits par des manipulations expérimentales, qui pourraient confondre les systèmes automatisés non conçus pour ces défis spécifiques. Ainsi, le développement d’algorithmes spécialisés de suivi oculaire et d’alignement pour l’imagerie rétinienne des rongeurs représente une direction future cruciale. En particulier, l’adaptation des algorithmes de suivi à long terme pour l’utilisation de petits animaux pourrait améliorer considérablement la précision et la reproductibilité des études longitudinales.
Alors que les techniques histologiques traditionnelles nécessitent des sacrifices d’animaux et excluent les études longitudinales, cette méthode d’imagerie CSLO assistée par AAV offre une approche non invasive pour surveiller la dynamique des cellules rétiniennes in vivo. Cette approche s’appuie sur des travaux antérieurs démontrant l’utilité de l’imagerie cSLO pour suivre les changements longitudinaux dans des cellules rétiniennes spécifiques après une lésion, en particulier dans des modèles animaux utilisant le marquage de protéines fluorescentes transgéniques 19,21,22,29. Ces études ont mis en évidence la capacité de CSLO à visualiser une gamme d’événements cellulaires rétiniens in vivo, y compris la mort cellulaire, la survie et potentiellement même la migration ou la croissance du processus. Ce protocole étend l’application de cette technique à l’étude de la transduction médiée par les AAV de populations cellulaires rétiniennes spécifiques, nous permettant de surveiller les effets à long terme de l’administration d’AAV et de l’expression des transgènes dans la rétine et fournissant des informations cruciales sur la progression des maladies rétiniennes et l’efficacité des interventions thérapeutiques. Les évaluations cliniques actuelles utilisant l’OCT se concentrent principalement sur la perte d’axones du CGR en mesurant l’épaisseurde la couche de fibres nerveuses rétiniennes de 9, mais elles n’ont pas la résolution nécessaire pour évaluer la morphologie individuelle du CGR ou l’implication des cellules gliales. Bien que l’AO-SLO permette l’imagerie au niveau cellulaire dans la rétine humaine vivante10, sa complexité et sa disponibilité limitée limitent son utilisation principalement dans les milieux de recherche. De plus, la différenciation des types de cellules gliales au sein de l’AO-SLO nécessite souvent des méthodes de marquage supplémentaires30. Cette méthode surmonte ces limites en fournissant une approche plus complète et plus accessible pour visualiser et suivre les CGR individuels et d’autres populations de cellules rétiniennes marquées par fluorescence au fil du temps. Cela ouvre la voie à l’étude des réponses cellulaires dans diverses conditions, ce qui contribue au développement de thérapies ciblées. De plus, la combinaison de l’imagerie CSLO assistée par AAV avec l’optogénétique31 ou l’imagerie calcique32 peut approfondir la compréhension de la fonction des cellules rétiniennes et de leurs rôles dans le traitement visuel, le développement des circuits et la régénération.
Malgré la force de cette approche, certaines limites et considérations de dépannage potentielles doivent être reconnues. Une variabilité de l’efficacité de la transduction de l’AAV peut se produire, nécessitant l’optimisation des paramètres d’injection ou du titre viral pour des types de cellules spécifiques ou des conditions expérimentales. L’imagerie CSLO peut être affectée par des facteurs tels que l’opacité cornéenne, l’instabilité du film lacrymal et les mouvements oculaires, nécessitant une surveillance et des ajustements minutieux lors de l’acquisition de l’image. De plus, la profondeur de pénétration limitée du CSLO limite la visualisation aux couches internes de la rétine, excluant potentiellement des structures plus profondes comme les photorécepteurs33. Le système Spectralis cSLO permet de visualiser clairement les caractéristiques et les motifs cellulaires distincts de la rétine34. Bien que cette modalité d’imagerie puisse faciliter l’observation de cellules uniques dans certaines conditions, comme démontré dans un travail précédent visualisant des CGR individuels chez des souris Thy1-YFP22 peu marquées, elle peut poser des défis pour quantifier les cellules individuelles dans des scénarios densément marqués. Par exemple, dans cette étude, le marquage de masse des CGR avec eGFP après une infection rétinienne médiée par AAV peut parfois entraver la visualisation claire des cellules individuelles, en particulier dans les zones où les niveaux d’expression varient et se chevauchent. Ce défi est encore aggravé lors de l’imagerie des cellules gliales de Müller, car leur morphologie allongée, couvrant toute l’épaisseur de la rétine35, rend difficile la capture d’une seule cellule dans un seul plan focal à l’aide de cSLO. L’évaluation de l’efficacité de l’infection gliale de Müller médiée par AAV9 repose donc principalement sur l’évaluation des modèles de transduction et de la distribution globaux à l’aide de l’imagerie CSLO.
De plus, alors que la moyenne de la TAR dans le système HRA améliore la qualité de l’image, l’augmentation de la durée du balayage présente des limites pratiques, en particulier dans l’imagerie des animaux éveillés. La valeur moyenne ART sélectionnée de 15 permet d’équilibrer la qualité de l’image et le temps de balayage, en fournissant une réduction suffisante du bruit tout en maintenant une durée de balayage raisonnable. Pour minimiser l’inconfort et le stress des animaux, les procédures d’imagerie doivent être optimisées pour plus d’efficacité, employer du personnel formé et compétent pour manipuler et imager les animaux éveillés, et surveiller diligemment les animaux pour détecter les signes d’inconfort ou de sécheresse cornéenne tout au long des séances d’imagerie. Ces mesures étaient cruciales pour garantir à la fois la qualité des données et le bien-être des animaux, soulignant l’importance de prendre en compte les deux facteurs lors de l’utilisation de la moyenne du TAR pour l’imagerie rétinienne in vivo dans des modèles animaux éveillés.
En reconnaissant ces limites et les sources potentielles de variabilité, les chercheurs peuvent prendre les mesures appropriées pour optimiser les protocoles d’imagerie, minimiser les artefacts et assurer la fiabilité et la reproductibilité de leurs données.
Dans l’ensemble, cette méthode accessible et facilement mise en œuvre offre un moyen puissant d’étudier l’interaction complexe entre les CGR et la glie de Müller, en particulier en réponse à une blessure ou à une maladie. En permettant aux chercheurs de visualiser et de quantifier ces interactions dynamiques, cette approche facilite la découverte de nouveaux mécanismes cellulaires et moléculaires sous-jacents aux pathologies rétiniennes. Cela permet à son tour de mettre en lumière le développement de stratégies thérapeutiques ciblées et l’amélioration des contre-mesures contre les maladies.
Déclarations de divulgation
Les auteurs n’ont rien à divulguer.
Remerciements
Ce travail a été soutenu par une subvention de la Fondation nationale des sciences naturelles de Chine (82130029). Les figures 2A et 4A ont été créées avec BioRender.com.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Aiguille de calibre 33 | Hamilton Corp., Reno, NV, États-Unis | 7803-05 | Pour injection intravitréenne |
| 0,5 % de proparacaïne ; | Santen Pharmaceutical Co., Ltd. | Aneasthetics topiques | |
| AAV2-hSyn-eGFP ; | OBiO Technology Corp., Chine | Titre de virus : 2,7 x 10¹² génomes viraux (vg)/mL ; | |
| AAV9-GfaABC1D-eGFP | WZ Biosciences Inc., Chine | Titre de virus : 4,5 x 10¹² génomes viraux (vg)/mL ; | |
| Betadine | Healthy medical company | 001651 | Antiseptiques topiques |
| Pince scérale cornéenne (dentée) | Mingren Eye Instruments, Chine | MR-F301A | Pour la sécurité de la paupière lors de l’injection intravitréenne |
| Dumont 05# forceps | FST | 51-AGT5385 | Pour l’écrasement du nerf optique |
| Prisme | Graphpad Prisme GraphPad Prism, USA | Dessin graphique et analyse statistique | |
| HRA Spectralis | Heidelberg Engineering, GmbH, Dossenheim, AllemagneMode | « IR » et « FA » pour l’imagerie CSLO | |
| Image J/Fiji | National Institutes of Health, USA | Traitement d’image | |
| Pommade antibiotique Maxitrol | Alcon Laboratories, INC. USA | 0065-0631 | Antibiotiques topiques |
| Seringue Microliter | Hamilton Corp., Reno, NV, États-Unis | 7633-01 | Pour injection intravitréenne |
| Mydrin-P Solution ophtalmique | Santen Pharmaceutical Co., Ltd, Japon | Dilatation | |
| de la pupille Microscope chirurgical ophtalmique ; | Leica AG, Heerbrugg, Suisse | M220 | Pour les opérations chirurgicales |
| Pentorbarbitol Sodium | Sigma Aldrich, USA | 57-33-0 | Anesthésie générale |
| Powerpoint | Microsoft Corporation, USA Alignement | et recadrage de l’image | |
| VISCOTEARS Liquid Gel (Carbomer) | Dr. Gerhard Mann, Chem.-Pharm. Fabrik, Allemagne | Lubrifiant topique ; |
Références
- Cheung, C. Y., Ikram, M. K., Chen, C., Wong, T. Y. Imaging retina to study dementia and stroke. Prog Retin Eye Res. 57, 89-107 (2017).
- Ju, W. K., et al. Glaucomatous optic neuropathy: Mitochondrial dynamics, dysfunction and protection in retinal ganglion cells. Prog Retin Eye Res. 95, 101136(2023).
- Vecino, E., Rodriguez, F. D., Ruzafa, N., Pereiro, X., Sharma, S. C. Glia-neuron interactions in the mammalian retina. Prog Retin Eye Res. 51, 1-40 (2016).
- Llorián-Salvador, M., Cabeza-Fernández, S., Gomez-Sanchez, J. A., De La Fuente, A. G. Glial cell alterations in diabetes-induced neurodegeneration. Cell Mol Life Sci. 81 (1), 47(2024).
- Zhao, N., Hao, X. N., Huang, J. M., Song, Z. M., Tao, Y. Crosstalk between microglia and müller glia in the age-related macular degeneration: Role and therapeutic value of neuroinflammation. Aging Dis. 15 (3), 1132-1154 (2023).
- Minhas, G., Sharma, J., Khan, N. Cellular stress response and immune signaling in retinal ischemia-reperfusion injury. Front Immunol. 7, 444(2016).
- Miao, Y., Zhao, G. L., Cheng, S., Wang, Z., Yang, X. L. Activation of retinal glial cells contributes to the degeneration of ganglion cells in experimental glaucoma. Prog Retin Eye Res. 93, 101169(2023).
- Leung, C. K. S., et al. Diagnostic assessment of glaucoma and non-glaucomatous optic neuropathies via optical texture analysis of the retinal nerve fibre layer. Nat Biomed Eng. 6 (5), 593-604 (2022).
- Hood, D. C., et al. Detecting glaucoma with only OCT: Implications for the clinic, research, screening, and AI development. Prog Retin Eye Res. 90, 101052(2022).
- Burns, S. A., Elsner, A. E., Sapoznik, K. A., Warner, R. L., Gast, T. J. Adaptive optics imaging of the human retina. Prog Retin Eye Res. 68, 1-30 (2019).
- Dinculescu, A., Glushakova, L., Min, S. H., Hauswirth, W. W. Adeno-associated virus-vectored gene therapy for retinal disease. Hum Gene Ther. 16 (6), 649-663 (2005).
- Nickells, R. W., Schmitt, H. M., Maes, M. E., Schlamp, C. L. AAV2-mediated transduction of the mouse retina after optic nerve injury. Invest Ophthalmol Vis Sci. 58 (14), 6091-6104 (2017).
- Cao, X., Yung, J., Mak, H., Leung, C. K. S. Factors governing the transduction efficiency of adeno-associated virus in the retinal ganglion cells following intravitreal injection. Gene Ther. 26 (3-4), 109-120 (2019).
- Vandenberghe, L. H., et al. Dosage thresholds for AAV2 and AAV8 photoreceptor gene therapy in monkey. Sci Transl Med. 3 (88), 88ra54(2011).
- Gao, Y., et al. Develop an efficient and specific AAV-based labeling system for Muller glia in mice. Sci Rep. 12 (1), 22410(2022).
- Nieuwenhuis, B., et al. Improving adeno-associated viral (AAV) vector-mediated transgene expression in retinal ganglion cells: Comparison of five promoters. Gene Ther. 30 (6), 503-519 (2023).
- Kawabata, H., et al. Improving cell-specific recombination using AAV vectors in the murine CNS by capsid and expression cassette optimization. Mol Ther Methods Clin Dev. 32 (1), 101185(2024).
- Smith, C. A., Chauhan, B. C. In vivo imaging of adeno-associated viral vector labelled retinal ganglion cells. Sci Rep. 8 (1), 1490(2018).
- Smith, C. A., Chauhan, B. C. Imaging retinal ganglion cells: Enabling experimental technology for clinical application. Prog Retin Eye Res. 44, 1-14 (2015).
- Leung, C. K. S., et al. Longitudinal profile of retinal ganglion cell damage after optic nerve crush with blue-light confocal scanning laser ophthalmoscopy. Invest Ophthalmol Vis Sci. 49 (11), 4898(2008).
- Leung, C. K. S., et al. In vivo imaging of murine retinal ganglion cells. J Neurosci Methods. 168 (2), 475-478 (2008).
- Mak, H. K., Ng, S. H., Ren, T., Ye, C., Leung, C. K. S. Impact of PTEN/SOCS3 deletion on amelioration of dendritic shrinkage of retinal ganglion cells after optic nerve injury. Exp Eye Res. 192, 107938(2020).
- Kokona, D., Jovanovic, J., Ebneter, A., Zinkernagel, M. S. In Vivo imaging of Cx3CR1GFP/GFP reporter mice with spectral-domain optical coherence tomography and scanning laser ophthalmoscopy. J Vis Exp. (129), e55984(2017).
- Abbott, C. J., et al. Imaging axonal transport in the rat visual pathway. Biomed Opt Express. 4 (2), 364-386 (2013).
- Levkovitch-Verbin, H., et al. RGC death in mice after optic nerve crush injury: Oxidative stress and neuroprotection. Invest Ophthalmol Vis Sci. 41 (13), 4169-4174 (2000).
- LaRocca, F., et al. Optimization of confocal scanning laser ophthalmoscope design. J Biomed Opt. 18 (7), 076015(2013).
- Vienola, K. V., et al. Real-time eye motion compensation for OCT imaging with tracking SLO. Biomed Opt Express. 3 (11), 2950-2963 (2012).
- Geng, Y., et al. Optical properties of the mouse eye. Biomed Opt Express. 2 (4), 717-738 (2011).
- Bosco, A., Romero, C. O., Ambati, B. K., Vetter, M. L. In vivo dynamics of retinal microglial activation during neurodegeneration: Confocal ophthalmoscopic imaging and cell morphometry in mouse glaucoma. J Vis Exp. (99), e52731(2015).
- Joseph, A., Power, D., Schallek, J. Imaging the dynamics of individual processes of microglia in the living retina in vivo. Biomed Opt Express. 12 (10), 6157-6170 (2021).
- Chaffiol, A., et al. A new promoter allows optogenetic vision restoration with enhanced sensitivity in macaque retina. Mol Ther. 25 (11), 2546-2560 (2017).
- Li, L., et al. Longitudinal in vivo Ca2+ imaging reveals dynamic activity changes of diseased retinal ganglion cells at the single-cell level. Proc Natl Acad Sci U S A. 119 (48), e2206829119(2022).
- Bille, J. F. Optical Coherence Tomography (OCT): Principle and technical realization. High-resolution imaging in microscopy and ophthalmology: New Frontiers in Biomedical Optics. , Springer International Publishing. 59-85 (2019).
- Spaide, R. F., et al. Lateral resolution of a commercial optical coherence tomography instrument. Transl Vis Sci Technol. 11 (1), 28(2022).
- Franze, K., et al. Muller cells are living optical fibers in the vertebrate retina. Proc Natl Acad Sci U S A. 104 (20), 8287-8292 (2007).
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible