Ce protocole décrit une méthode pour induire la cardiomyopathie diabétique par une combinaison d’alimentation riche en graisses et d’injection de streptozotocine. Cette approche vise à fournir un cadre fiable pour la recherche scientifique sur la cardiomyopathie diabétique et à explorer des pistes potentielles pour des applications de traitement clinique.
Article de méthode
Modélisation et évaluation d’un modèle murin de cardiomyopathie diabétique
* These authors contributed equally
Dans cet article
Résumé
Résumé
Les mécanismes physiopathologiques sous-jacents de la cardiomyopathie diabétique (DbCM), l’une des principales causes de mortalité chez les patients atteints de diabète sucré de type 2 (DT2), restent mal compris. La toxicité myocardique associée au DT2 est attribuée à des facteurs tels que la lipotoxicité, la glucotoxicité, le stress oxydatif, la réduction de l’efficacité cardiaque et la lipoapoptose. Par rapport aux rats, les souris offrent une plus grande accessibilité, une meilleure rentabilité et une plus grande applicabilité pour les expériences sur les animaux. La résistance à l’insuline et l’altération de la sécrétion d’insuline sont des facteurs cruciaux dans la physiopathologie du DT2. Nous introduisons un nouveau modèle murin non génétique qui reproduit la progression de la DbCM humaine induite par une combinaison d’alimentation riche en graisses (HFD) et d’injection de streptozotocine (STZ). Dans cette étude, nous avons utilisé des souris C57BL/6J de type sauvage, administrant un régime HFD pendant 12 semaines, suivi d’injections intrapéritonéales de STZ pendant 12 semaines supplémentaires pour induire des manifestations caractéristiques du DT2. Nous avons effectué des tests de tolérance au glucose par voie orale et mesuré les concentrations sériques d’insuline pour confirmer le développement d’une résistance à l’insuline et d’une sécrétion insuffisante d’insuline. La structure et la fonction cardiaques ont été rigoureusement évaluées par échocardiographie transthoracique non invasive. Les caractéristiques pathologiques ont été évaluées par coloration trichrome de Masson et coloration à l’agglutinine de germe de blé (WGA), révélant des caractéristiques pathologiques liées au DbCM. Par conséquent, nous fournissons une méthode robuste et polyvalente pour établir un modèle murin non génétique de DbCM.
Introduction
Le diabète sucré de type 2 (DT2) est un problème de santé mondial qui s’aggrave progressivement, et constitue l’une des principales causes de morbidité et de mortalité chez les personnes touchées. La prévalence du DT2 est étroitement liée à l’épidémie croissante d’obésité 1,2. Plus d’un tiers des patients atteints de DT2 présentent un phénotype cardiovasculaire distinct appelé cardiomyopathie diabétique (DbCM), caractérisé par un dysfonctionnement myocardique qui se produit indépendamment de la maladie coronarienne, de l’hypertension et de la cardiopathie valvulaire3. De nouvelles données suggèrent qu’environ 20 % des patients diabétiques sont prédisposés à développer une insuffisance cardiaque3, une maladie étroitement associée à leur pronostic4. Plusieurs mécanismes physiopathologiques de la DbCM ont été proposés, notamment l’inflammation5, le remodelage et le dysfonctionnement cardiaques6, le dysfonctionnement mitochondrial7, le stress oxydatif8 et les perturbations métaboliques9. Malgré des recherches approfondies, l’ensemble des mécanismes et leurs contributions individuelles à la DbCM restent incomplètement compris10. Par conséquent, des modèles animaux précliniques bien établis sont essentiels pour faire avancer l’étude de cette maladie.
Le DT2 se caractérise par une résistance à l’insuline et une insuffisance insulinique progressive11, la plupart étant en surpoids ou obèses12. Dans cette étude, nous établissons un modèle murin stable et modifié de DbCM basé sur des études antérieures, combinant une alimentation riche en graisses (HFD) et l’injection de streptozotocine (STZ). Dans le DT2, la résistance à l’insuline et la destruction des cellules β pancréatiques contribuent à la physiopathologie de la maladie12. Ce modèle s’appuie sur deux facteurs de risque importants du DT2. Plus précisément, les souris nourries avec HFD développent une résistance à l’insuline, et les injections ultérieures de STZ altèrent davantage la fonction des cellules β des îlots pancréatiques, conduisant de manière significative à la progression de la physiopathologie de type T2DM. La STZ, isolée de Streptomyces achromogenes, a été décrite pour la première fois en 1963 pour sa destruction sélective des cellules β des îlots pancréatiques et ses propriétés diabétogènes13. Il existe deux modèles de traitement STZ : l’administration d’une dose relativement élevée de STZ entraîne un modèle de cardiomyopathie à court terme, tandis que des injections répétées de STZ à faible dose induisent un modèle de DT2 qui évolue naturellement vers le DbCM. À la suite de cette dernière méthode, les animaux développent une hyperglycémie, une polydipsie et une polyurie, qui sont toutes des caractéristiques du DT2 humain et développent naturellement le DbCM.
Cette étude a révélé que les souris C57BL/6J de type sauvage nourries avec un HFD suivi d’injections intrapéritonéales de STZ (30 mg/kg) présentaient une fonction cardiaque, une morphologie et une histologie compatibles avec les caractéristiques du DbCM à la fin de l’expérience. Cette approche fournit une méthode efficace pour établir un modèle DbCM murin.
Protocole
Toutes les procédures ont suivi les directives institutionnelles pour la recherche sur les animaux, conformément au Guide for the Care and Use of Laboratory Animals décrit par les National Institutes of Health des États-Unis (publication NIH n° 85-23, révisée en 1996). Toutes les expériences sur les animaux ont été approuvées par le Comité d’éthique des soins aux animaux et le Comité d’éthique de l’Université du Sichuan. Les souris mâles C57BL/6J ont été achetées à Beijing Vital River Laboratory Animal Technology Co. (Chine). Pendant toute la durée de l’expérience, les souris ont été logées dans des conditions contrôlées de 24 °C et un cycle lumière/obscurité régulé de 12 heures, avec un accès ad libitum à la nourriture et à l’eau.
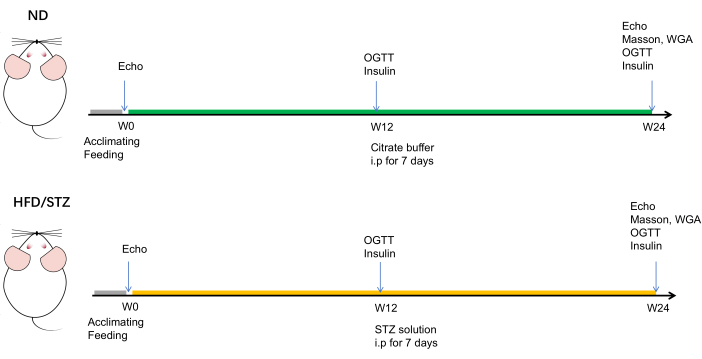
Figure 1 : Chronologie schématique de l’expérience. Les souris utilisées dans les groupes HFD/STZ et ND étaient toutes deux âgées d’environ 7 à 8 semaines. Le poids corporel et la glycémie aléatoire de chaque souris ont été enregistrés sur une base hebdomadaire. À des intervalles de 12 semaines et de 24 semaines, le phénotype métabolique des souris a été évalué par un test de tolérance au glucose par voie orale (HGPO) et une mesure du taux d’insuline sérique. De plus, l’échocardiographie a été évaluée au départ (semaine 0), à 12 semaines et à 24 semaines. Après la période d’alimentation de 24 semaines, les souris ont été euthanasiées. Veuillez cliquer ici pour voir une version agrandie de cette figure.
1. Alimentation HFD
- Nourrir des souris mâles C57BL/6J (âgées de 7 à 8 semaines) avec un régime normal (ND) ou HFD (60 % de matières grasses kcal) pendant 24 semaines pour induire l’obésité.
- Notez le poids corporel de chaque souris toutes les 4 semaines. Assurez-vous que la courbe de poids présente une tendance ascendante similaire avant 12 semaines, avec une pente plus raide observée dans le groupe HFD.
2. Préparation et injection de la solution STZ
REMARQUE : Stockez STZ à -20 °C pour éviter la dégradation due à sa grande instabilité à température ambiante (RT). Mélanger STZ avec un tampon de citrate immédiatement dans les 5 minutes précédant l’injection.
- Préparez le tampon de citrate. Peser 2,1 g d’acide citrique (masse moléculaire relative : 210,14) et le dissoudre complètement dans 100 mL d’eau distillée pour préparer la solution A ; peser 2,94 g de citrate de sodium (masse moléculaire relative : 294,10) et le dissoudre complètement dans 100 mL d’eau distillée pour préparer la solution B. Mélanger les solutions A et B dans un rapport de 1 : 1,32 pour obtenir la solution de travail de l’acide citrique. Filtrez les impuretés à l’aide d’une membrane filtrante de 0,45 μm.
- Peser 1 g de STZ et le dissoudre complètement dans 100 mL de la solution de travail mixte d’acide citrique préparée. Conservez la solution STZ obtenue à 4 °C. S’assurer que l’injection de la solution STZ a lieu dans les 30 minutes lorsque cela est possible.
- À l’aide d’une seringue de 1 mL, administrer des injections intrapéritonéales d’une solution contenant 30 mg/kg de STZ par jour pendant 7 jours consécutifs aux souris du groupe HFD/STZ tout en fournissant un volume égal de tampon de citrate (0,1 mmol/L, pH = 4,5) aux souris du groupe ND.
- Dosez la glycémie 1 semaine après l’injection finale. Classer les souris présentant des concentrations aléatoires de glucose dans le sang supérieures à 16,7 mmol/L comme des souris T2DM.
- Positionnez soigneusement la souris sur un dispositif de retenue, en vous assurant que sa queue s’étend complètement vers l’extérieur.
- Avant le prélèvement sanguin, désinfectez soigneusement le site de prélèvement de sang de la queue avec un tampon d’alcool à 70 %, en maintenant la stérilité et la propreté.
- À l’aide d’une aiguille à pointe pointue, insérez-la dans la veine de la queue, en avançant de la pointe vers la base à une profondeur de 3-4 mm. Une fois que l’aiguille est bien en place, pressez doucement le haut de la queue pour favoriser la circulation sanguine.
- Prélevez environ 10 μL de sang sur une souris et appliquez soigneusement le sang collecté sur la bandelette de test dédiée. Une fois le sang absorbé, le glucomètre affichera rapidement la lecture de la glycémie.
3. Test de tolérance au glucose par voie orale (OGTT)14
- Avant le HGPO, jeûnez chaque souris pendant la nuit pendant 14 h, pendant qu’elle a un accès illimité à l’eau.
- Préparez environ 10 ml d’une solution de glucose à 20 %. Administrer une dose de 1 g/kg de glucose par gavage oral à chaque souris pendant l’HGPO.
- Surveillez la glycémie à plusieurs moments : immédiatement (0 min), 15 min, 30 min, 60 min et 120 min après l’administration.
4. Évaluation de la fonction cardiaque par échocardiographie
- Effectuer une échocardiographie sur chaque souris au départ (0 semaine), 12 semaines et 24 semaines après l’alimentation avec HFD ou ND.
- Avant l’échocardiographie, anesthésie la souris par inhalation d’isoflurane à 3 % qui est administré avec 100 % d’oxygène à l’aide d’un appareil anesthésique. Assurez-vous que la souris ne montre aucune réaction au pincement de la peau à l’aide d’une pince à épiler dentée ou d’une stimulation de ses orteils et de sa queue. Appliquez une pommade vétérinaire sur les yeux pour prévenir la sécheresse pendant l’anesthésie.
- Placez la souris sur un coussin chauffant pour maintenir la température corporelle et fixez ses griffes à une électrode pour assurer une position couchée stable. Ajustez la concentration d’isoflurane entre 1 % et 2 % pour l’anesthésie d’entretien afin de maintenir une fréquence cardiaque cible d’environ 450 battements par minute.
- Retirez la fourrure de la souris à l’aide d’une crème dépilatoire et appliquez du gel à ultrasons sur sa poitrine. Retirer la crème dépilatoire et le gel à ultrasons avec une solution saline stérile après échocardiographie.
- Évaluez la fonction cardiaque et les paramètres structurels à l’aide d’une sonde de 50 MHz.
- Pour obtenir une vue optimale du ventricule gauche (VG) dans le grand axe, positionnez la sonde sur le côté gauche de la poitrine de l’animal.
- En fonction de l’anatomie de chacun, tournez la sonde dans le sens inverse des aiguilles d’une montre entre 15° et 45° par rapport à la ligne parasternale gauche, avec l’encoche dirigée vers son épaule droite. Ajustez l’axe x et l’axe y sous le mode B15.
REMARQUE : Une vue longitudinale VG appropriée doit inclure (i) la valve aortique et la racine aortique ; (ii) la chambre LV est positionnée au centre de la vue ; (iii) L’axe de la base à l’apex doit être parallèle à la sonde16. - Appuyez 2x sur le mode M pour afficher la ligne de mesure. Positionnez cette ligne au niveau du muscle papillaire. Par la suite, prenez des mesures pendant au moins trois battements cardiaques consécutifs pour assurer la précision. Appuyez sur Enregistrer le clip pour enregistrer la boucle de cinéma dans la série.
- Identifiez la dimension end-systolique comme la phase qui a coïncidé avec l’onde T de l’ECG, et déterminez la dimension de la fin de la diastolique comme la phase correspondant à l’onde R de l’ECG.
- Inclinez le bloc de commande en vous assurant que le coin supérieur gauche est le plus bas et que le coin inférieur droit est le plus haut. Ajustez la sonde pour qu’elle pénètre dans la direction de l’apex cardiaque de la souris, parallèlement à l’axe long du cœur, afin d’obtenir une vue transapicale à quatre chambres.
- Sélectionnez successivement les modes C (Doppler couleur) et PW (Doppler PW), placez le volume de l’échantillon au point de vitesse le plus élevé, ajustez la direction de l’échantillonnage pour qu’elle corresponde à la direction du flux sanguin et enregistrez les informations hémodynamiques de la valve mitrale (ondes E et A)16. Appuyez sur Enregistrer le clip pour enregistrer la boucle de cinéma dans la série.
- Arrêtez l’inhalation d’isoflurane pour permettre aux souris de reprendre conscience. Remettez les animaux dans leurs cages, logées dans un environnement contrôlé avec un cycle lumière/obscurité de 12 heures à la 0e et à la 12e semaine. Après l’évaluation échocardiographique de 24 semaines, euthanasier sans cruauté les souris par luxation cervicale après inhalation d’isoflurane.
- Effectuez l’analyse de la fraction d’éjection (EF), du raccourcissement de la fraction (FS), de la paroi postérieure ventriculaire gauche (LVPW), du diamètre interne du ventricule gauche (LVID), du septum interventriculaire (IVS) et du rapport E/A à l’aide du dongle du poste de travail.
5. Coloration histologique
- Après avoir terminé l’analyse échocardiographique au bout de 24 semaines, euthanasier la souris par luxation de la moelle épinière après inhalation d’isoflurane.
- Disséquez la souris à l’aide de ciseaux ophtalmiques et d’une pince à épiler. Sectionnez les côtes avec soin pour assurer une exposition complète du cœur.
- Perfuser le cœur par l’apex avec une solution saline jusqu’à ce que le foie devienne pâle, indiquant une perfusion réussie. Retirez le cœur et rincez-le abondamment dans une solution saline pour assurer une élimination complète du sang.
- Effectuer l’incorporation de paraffine17.
- Fixez le cœur avec du formol à 4 % à RT pendant au moins 24 h.
- Placez la boîte de déshydratation contenant le cœur dans un déshydrateur pour qu’elle subisse un processus de déshydratation progressif impliquant un gradient d’alcool et une lixiviation à la cire à 65 °C.
- Préparez des coupes de tissu17.
- Placez le bloc de cire taillé contenant le muscle papillaire dans un microtome pour le tranchage, d’une épaisseur de 4 μm, et stockez-le à RT pour la coloration pathologique.
- Effectuer la coloration à l’aide du trichrome18 de Masson et de la coloration à l’agglutinine de germe de blé (WGA)19 .
Résultats
Cette étude a impliqué une répartition aléatoire des souris en deux groupes : le groupe ND et le groupe HFD/STZ, avec 6 souris dans chaque groupe. Après l’échocardiographie finale et les tests OGTT 24 semaines après l’alimentation, les souris ont été euthanasiées pour prélever leurs tissus cardiaques pour une évaluation histologique.
HFD/STZ a provoqué une prise de poids corporelle évidente, atteignant son pic en 12 semaines, et était significativement plus élevée par rapport au groupe ND. Après l’administration de STZ, une diminution notable du poids corporel a été observée chez les souris du groupe HFD/STZ. En revanche, les souris du groupe ND ont maintenu une augmentation constante de leur poids corporel au cours de la période de 12 semaines qui a suivi (figure 2A). Les taux de glucose sanguin aléatoires du groupe HFD/STZ étaient toujours significativement plus élevés que ceux du groupe ND pendant toute la durée de l’alimentation (figure 2B). La courbe OGTT du groupe HFD/STZ était significativement plus élevée que celle du groupe ND. Il était évident que le pic de glycémie dans les deux groupes atteignait en 15 minutes puis diminuait (Figure 2C, D). Au cours de l’étude, les taux d’insuline sérique dans le groupe ND étaient initialement plus élevés que dans le groupe HFD au cours des 12 premières semaines. Cependant, après l’administration de STZ, une tendance inversée a été observée avec les taux d’insuline sérique (Figure 2E,F).
Les cœurs exposés à la HFD/STZ présentaient à la fois une dysfonction diastolique et systolique par rapport au groupe ND, se présentant par une faible amplitude de la pulsation du septum interventriculaire (IVS) et de la paroi postérieure du ventricule gauche (LVPW) (Figure 3), une diminution de la fraction d’éjection (EF) et du raccourcissement fractionnel (FS) (Figure 4A,B), une augmentation de la dimension interne ventriculaire gauche (LVID) en fin de diastolique, une augmentation de l’IVS et du LVPW (Figure 4C, D, E), et diminution du rapport E/A (Figure 4F) dans le groupe HFD/STZ en 24 semaines.
Le remodelage cardiaque résultant de troubles métaboliques est illustré à la figure 5A, B. Un examen histologique a révélé une augmentation de la fibrose cardiaque et de la proportion de la zone occupée par les cardiomyocytes dans le groupe HFD/STZ, par rapport au groupe ND (Figure 5C).
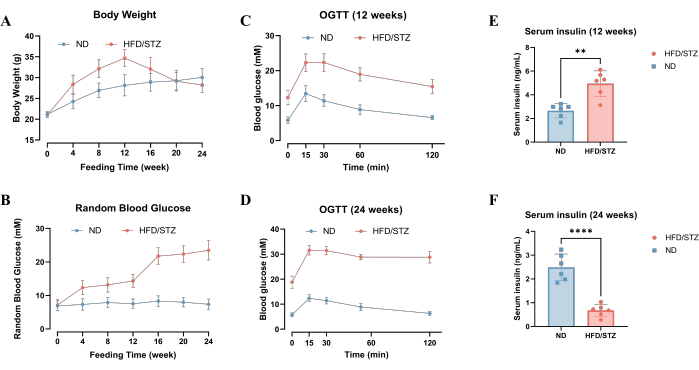
Figure 2 : Variation du poids corporel, de la glycémie aléatoire, de l’OGTT et du taux d’insuline sérique pendant l’heure du repas. (A) Changement du poids corporel des souris pendant l’heure du repas. La courbe de poids présentait une tendance ascendante similaire avant 12 semaines, avec une pente plus raide observée dans le groupe. Après la période de 12 semaines, une réduction notable du poids a été observée dans le groupe HFD/STZ, tandis que le groupe ND a maintenu sa trajectoire ascendante de gain de poids. (B) Des niveaux de glucose sanguin aléatoires ont changé pendant l’heure du repas. La glycémie est restée stable dans le groupe ND, tandis qu’elle a continué à augmenter dans le groupe HFD/STZ, avec une augmentation significative après 12 semaines. (C) et (D) Glycémie pendant l’OGTT à 12 semaines et à 24 semaines d’alimentation. (E, F) Taux d’insuline sérique à 12 semaines et 24 semaines pour les groupes ND et HFD/STZ. Après 12 semaines d’expérimentation, le taux d’insuline dans le groupe HFD/STZ a montré une augmentation notable par rapport au groupe ND. Cependant, au bout de 24 semaines, cette tendance s’est inversée, le taux d’insuline dans le groupe HFD/STZ étant significativement inférieur à celui du groupe ND. Les données sont présentées sous forme de moyennes ± d’écarts-types. Les valeurs P ont été calculées par test t non apparié. ** : P < 0,01, *** : P < 0,001, **** : P < 0,0001 ; ND (n = 6) vs HFD/STZ (n = 6). Veuillez cliquer ici pour voir une version agrandie de cette figure.
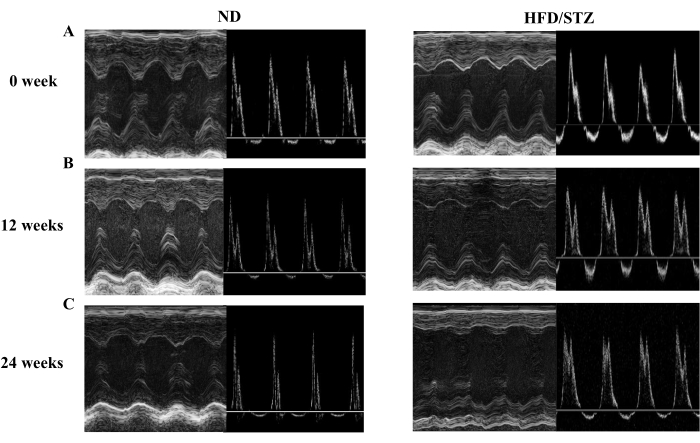
Figure 3 : Échocardiographie représentative en mode M et onde E/A de la valve mitrale à 0, 12 et 24 semaines. Il y avait des différences dans les hauteurs des pics E et A entre les deux groupes, le pic E > le pic A à 0 semaine et le pic E presque égal au pic A à 24 semaines dans le groupe HFD/STZ. L’échographie Doppler couleur en mode M a montré que l’amplitude des pulsations IVS et LVPW était plus faible dans le groupe HFD/STZ à 12 et 24 semaines. Veuillez cliquer ici pour voir une version agrandie de cette figure.
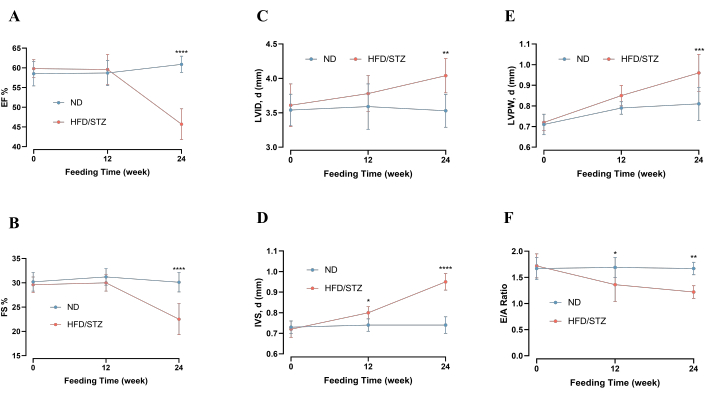
Figure 4 : Résultats quantitatifs de la structure et de la fonction cardiaques. (A) Fractions d’éjection (FE) ; (B) Vente à découvert de fractions (FS) ; (C) Diamètre interne de l’extrémité diastolique ventriculaire gauche (LVID, d) ; (D) septum interventriculaire en fin de diastole (IVS, d) ; (E) Paroi postérieure diastolique ventriculaire gauche (LVPW, d) ; (F) Rapport E/A. À 12 semaines, le groupe HFD/STZ présentait une dysfonction diastolique, se manifestant par une augmentation du rapport LVID et E/A et une FE normale. À 24 semaines, les fonctions systolique et diastolique ont diminué, montrant un épaississement de l’EF et de l’IVS, des diminutions significatives de l’EF et de l’EF, d’autres augmentations de l’EF et d’autres diminutions du rapport E/A. Les données sont présentées sous forme de moyennes ± d’écarts-types. Les valeurs P ont été calculées par test t non apparié. * : P < 0,05, ** : P < 0,01, *** : P < 0,001, **** : P < 0,0001 ; ND (n = 6) vs HFD/STZ (n = 6). Veuillez cliquer ici pour voir une version agrandie de cette figure.
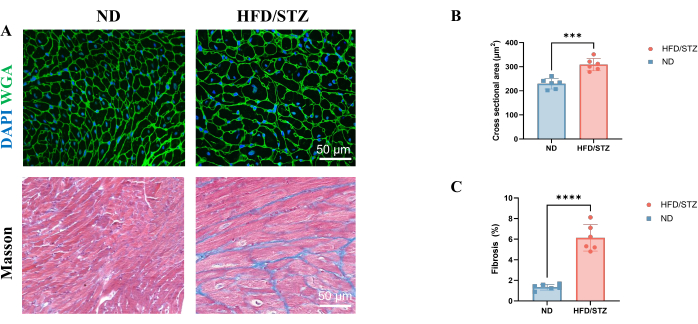
Figure 5 : Les souris du groupe HFD/STZ entraînent un remodelage cardiaque après 24 semaines. (A) Coloration WGA représentative des tissus cardiaques dans chaque groupe. (B) Coloration représentative de Masson des tissus cardiaques dans chaque groupe. (C, D) Une augmentation significative de la fibrose et de l’hypertrophie cardiaque a été observée dans le groupe HFD/STZ par rapport au groupe ND. Les données sont présentées sous forme de moyenne ± d’écart-type. Les valeurs P ont été calculées par test t non apparié. : P < 0,001, **** : P < 0,0001 ; ND (n=6) vs HFD/STZ (n=6). Veuillez cliquer ici pour voir une version agrandie de cette figure.
Discussion
Compte tenu de la prévalence généralisée du diabète sucré et de ses complications cardiovasculaires associées dans le monde, il est urgent de découvrir les mécanismes moléculaires sous-jacents et de développer des stratégies préventives et thérapeutiques pour cette maladie20. La pathogenèse du DbCM, l’une des complications cardiovasculaires chez les patients atteints de DT2, reste incertaine, et il n’existe aucune approche efficace pour prévenir et traiter21. L’absence de modèles précliniques fiables qui imitent avec précision les processus physiopathologiques du cœur humain souligne l’importance de développer un modèle stable et efficace spécialement conçu pour étudier les mécanismes DbCM.
Le protocole que nous présentons décrit une méthode bien établie et stable pour générer un modèle murin DbCM, qui sert d’outil robuste pour étudier le dysfonctionnement myocardique associé au DT2. L’alimentation HFD pour induire une résistance à l’insuline est généralement considérée comme une approche efficace pour modéliser de nombreuses complications associées au diabète humain22. Dans cette méthode, le HFD est associé à des injections de STZ à faible dose, un agent qui induit des lésions des îlots pancréatiques. Cette méthode permet de mieux simuler le processus de résistance à l’insuline et d’insuffisance insulinique relative.
En général, les modèles précliniques de DbCM se divisent en deux catégories : les modèles génétiques et les modèles induits par l’alimentation pharmacologiquement. La souris ob/ob 23,24, la souris db/db 25,26 et la souris diabétique Zucker27 sont les trois modèles génétiques les plus largement utilisés28,29. Ces trois modèles de rongeurs développent une augmentation du poids corporel, une hyperglycémie, une altération de la manipulation du glucose et une résistance à l’insuline en raison de l’intervention de la signalisation de la leptine ou de son récepteur. Cependant, la leptine a des propriétés cardioprotectrices30, ce qui peut potentiellement compliquer l’interprétation des résultats de ces modèles, car les altérations de la signalisation de la leptine peuvent affecter directement la fonction cardiaque. De plus, les mutations du récepteur de la leptine sont rarement à l’origine du DT2 chez l’homme31. De plus, les modèles génétiques sont également coûteux et présentent des différences importantes par rapport à la condition humaine32. Par rapport aux rats, les souris sont plus facilement disponibles, plus rentables et plus largement utilisées dans les expériences sur les animaux. Certaines études utilisent des méthodes purement diététiques pour établir le modèle de DT2, telles que HFD et/ou le sucre (riche en saccharose ou en fructose), qui peuvent provoquer l’obésité, la résistance à l’insuline et le diabète 33,34,35,36. Cependant, la gravité de l’hyperglycémie et de la résistance à l’insuline est moins prononcée par rapport aux modèles génétiques comme les souris ob/ob ou db/db 37.
La combinaison de l’agent induit par l’alimentation avec l’agent diabétogène STZ est considérée comme plus appropriée pour la recherche médicale que les modèles basés sur l’alimentation seuls. Bien que les procédures générales du modèle HFD/STZ DbCM aient été décrites dans plusieurs études, nous avons apporté plusieurs améliorations. Bien que le DT2 prédomine parmi les cas de diabète chez l’homme, la création d’un modèle animal pour celui-ci présente de plus grands défis par rapport au DT1. Le facteur pivot réside dans le dosage et la fréquence des injections de STZ, qui ont un impact significatif sur l’établissement du modèle. Des doses excessives de STZ donnent un modèle ressemblant étroitement au DT1 et entraînent des taux de mortalité plus élevés.
Des études antérieures ont indiqué que l’administration de plusieurs injections à faible dose de STZ à une dose de 50 mg / kg modélise mieux le DT2 31,38,39. Cependant, ces études ont souvent des durées d’alimentation relativement courtes, allant de 3 semaines avec une teneur variable en matières grasses. Une étude menée par Ahlke Heydemann40 a montré que l’alimentation prolongée par HFD entraîne un stockage excessif des lipides, entraînant une toxicité des lipides, l’obésité, une diminution de la flexibilité métabolique, un stress oxydatif et une inflammation chronique - des conditions similaires à celles observées dans le tissu cardiaque DbCM. Dans cette étude, nous avons prolongé la période d’alimentation HFD à 24 semaines et utilisé une concentration STZ plus faible (30 mg/kg) pour imiter la pathologie DbCM. Les souris C57BL/6J, porteuses d’un gène les prédisposant au DT2, ont été utilisées comme animal modèle41,42. Nos observations ont révélé qu’après 12 semaines, les souris du groupe HFD/STZ ont commencé à perdre du poids. Il est important de noter que la perte de poids dans le diabète peut être une question complexe. Bien que l’insuffisance insulinique et l’hyperglycémie puissent entraîner une perte de poids, d’autres facteurs tels que la diminution de l’appétit, les changements alimentaires et l’augmentation de l’activité physique peuvent également jouer un rôle. De plus, tous les patients diabétiques ne subissent pas de perte de poids ; Certains peuvent même prendre du poids, en particulier s’ils ont une résistance à l’insuline et suivent un régime riche en calories.
Cette méthode présente certaines limites. Tout d’abord, le développement de DbCM prend un temps relativement long, soit 24 semaines au total. De plus, la STZ peut présenter une toxicité pour les organes et les tissus au-delà des îlots pancréatiques, ce qui rend le modèle HFD/STZ moins précis dans la reproduction de la maladie humaine. De plus, le tampon de citrate, utilisé pour les STZ, a un pH de 4,5. L’administration de solutions acides par voie intrapéritonéale peut nuire aux animaux en provoquant une hémolyse des globules rouges, ainsi que des douleurs et une gêne43, ce qui peut limiter l’applicabilité du modèle. Enfin, les manifestations cardiaques chez les patients atteints de DT2 sont variées et souvent accompagnées d’hypertension, de maladies coronariennes et d’autres maladies cardiovasculaires, ce qui complique la prise en charge clinique. Dans ce modèle, les manifestations cardiaques comprennent la dilatation et l’hypertrophie du VG, ainsi que la dysfonction systolique et diastolique, mais celles-ci ne représentent pas entièrement le spectre de la DbCM observée dans la pratique clinique. DbCM comprend également des caractéristiques telles que les altérations électrophysiologiques44 ou les modifications auriculaires45, alors que l’accent est mis ici principalement sur la structure VG et le fonctionnement de la pompe.
Conformément aux études précédentes, la méthode décrite ici consistant à combiner l’alimentation HFD avec des injections de STZ vise à induire le diabète plus rapidement en détruisant partiellement le tissu pancréatique et en induisant une résistance à l’insuline au modèle DbCM. Des cardiomyocytes hypertrophiés avec un arrangement désorganisé, une rupture des fibres myocardiques, une dissolution, une réduction des FE, des FS, etc., indiquent un dysfonctionnement myocardique et une fonction cardiaque réduite. En résumé, nous avons présenté une approche pour établir DbCM de manière rentable et pratique. En utilisant des techniques échocardiographiques non invasives et une coloration pathologique, nous avons évalué l’efficacité de cette méthode.
Déclarations de divulgation
Les auteurs n’ont rien à divulguer.
Remerciements
Ce travail a été soutenu par la Fondation nationale des sciences naturelles de Chine (numéros de subvention : U23A20395, 81900258 et 82170375) ; le projet clé de recherche et de développement du Département des sciences et de la technologie de la province du Sichuan (2022ZDZX0020) ; Projet de fonds spécial pour la recherche clinique de la branche cardiovasculaire de l’Association médicale chinoise (CSC) (CSCF2020B04) ; 1· 3· 5 projet de l’hôpital de Chine occidentale, Université du Sichuan (ZYGD23021). Merci à Qing Yang (Animal Imaging Core Facilities, West China Hospital, Sichuan University) pour leur aide en échographie de petits animaux.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Système de sonorisation animale | Fujifilm Visual Sonics | VEVO 3100 | Échocardiographie |
| Glucomètre sanguin | Yuwell | GU100 | Évaluer la glycémie |
| Acide citrique | Sigma-Aldrich 251275 | ||
| Isoflurane | RWD sciences de la vie | R510-22 | Anesthésie |
| Vaporisateur d’isoflurane | RWD sciences de la vie | R500 | anesthésie |
| Insuline de souris (INS) ELISA Kit | Wuhan Feiyue Biotechnology Co.,Ltd | FY-EM14029 | Évaluer le taux d’insuline sérique |
| Nair crème dépilatoire | Nair | 255g | Enlever la fourrure de la souris |
| Régime des rongeurs avec 60 % de kcal de graisse | Research Diets Inc | D12492 | Alimentation riche en graisses |
| Citrate de sodium | Sigma-Aldrich S4641 | ||
| Filtre stérile | Merck Millipore | SLHV033N | |
| Streptozocine | Solarbio | S8050 | |
| Gel à ultrasons | Keppler | KL-250 | Échocardiographie |
| Poste de travail Dongle | Fujifilm Visual Sonics | Vevo LAB | Analyse des données échocardiographiques |
Références
- Defronzo, R. A., et al. Type 2 diabetes mellitus. Nat Rev Dis Primers. 1, 15019(2015).
- Htay, T., et al. Mortality and cardiovascular disease in type 1 and type 2 diabetes. Curr Cardiol Rep. 21 (6), (2019).
- Jia, G., Hill, M. A., Sowers, J. R. Diabetic cardiomyopathy: An update of mechanisms contributing to this clinical entity. Circ Res. 122 (4), 624-638 (2018).
- Kenny, H. C., Abel, E. D. Heart failure in type 2 diabetes mellitus. Circ Res. 124 (1), 121-141 (2019).
- Biernacka, A., et al. Smad3 signaling promotes fibrosis while preserving cardiac and aortic geometry in obese diabetic mice. Circ Heart Fail. 8 (4), 788-798 (2015).
- Van Linthout, S., et al. Reduced MMP-2 activity contributes to cardiac fibrosis in experimental diabetic cardiomyopathy. Basic Res Cardiol. 103 (4), 319-327 (2008).
- Ni, R., et al. Therapeutic inhibition of mitochondrial reactive oxygen species with mito-tempo reduces diabetic cardiomyopathy. Free Radic Biol Med. 90, 12-23 (2016).
- Tan, Y., et al. Diabetic downregulation of Nrf2 activity via erk contributes to oxidative stress-induced insulin resistance in cardiac cells in vitro and in vivo. Diabetes. 60 (2), 625-633 (2011).
- Maack, C., et al. Heart failure and diabetes: Metabolic alterations and therapeutic interventions: A state-of-the-art review from the translational research committee of the heart failure association-european society of cardiology. Eur Heart J. 39 (48), 4243-4254 (2018).
- Ho, K. L., et al. structural and biochemical changes in diabetes and the development of heart failure. Diabetologia. 65 (3), 411-423 (2022).
- Saisho, Y. Beta-cell dysfunction: Its critical role in prevention and management of type 2 diabetes. World J Diabetes. 6 (1), 109-124 (2015).
- Galicia-Garcia, U., et al. Pathophysiology of type 2 diabetes mellitus. Int J Mol Sci. 21 (17), 6275(2020).
- Junod, A., et al. Studies of the diabetogenic action of streptozotocin. Proc Soc Exp Biol Med. 126 (1), 201-205 (1967).
- Einwallner, E., Nagy, C. Study of in vivo glucose metabolism in high-fat diet-fed mice using oral glucose tolerance test (OGTT) and insulin tolerance test (ITT). J Vis Exp. (131), e56672(2018).
- Wang, Q., et al. Induction of right ventricular failure by pulmonary artery constriction and evaluation of right ventricular function in mice. J Vis Exp. (147), e59431(2019).
- Zacchigna, S., et al. Towards standardization of echocardiography for the evaluation of left ventricular function in adult rodents: A position paper of the ESC working group on myocardial function. Cardiovasc Res. 117 (1), 43-59 (2021).
- Paraffin sides experiment report. , Servicebio. At https://www.servicebio.com/data-detail?id=5556&code=BLZPSYBG (2022).
- staining experiment report. , Servicebio. At https://www.servicebio.com/data-detail?id=5588&code=RSSYBG (2022).
- Paraffin WGA staining protocol. , Servicebio. At https://www.servicebio.com/data-detail?id=5041&code=MYYGSYBG (2022).
- Guariguata, L., et al. Global estimates of diabetes prevalence for 2013 and projections for 2035. Diabetes Res Clin Pract. 103 (2), 137-149 (2014).
- Tan, Y., et al. Mechanisms of diabetic cardiomyopathy and potential therapeutic strategies: Preclinical and clinical evidence. Nat Rev Cardiol. 17 (9), 585-607 (2020).
- Prasad, M., et al. A comprehensive review on high -fat diet-induced diabetes mellitus: An epigenetic view. J Nutr Biochem. 107, 109037(2022).
- Zhang, Y., et al. Positional cloning of the mouse obese gene and its human homologue. Nature. 372 (6505), 425-432 (1994).
- Adingupu, D. D., et al. Sglt2 inhibition with empagliflozin improves coronary microvascular function and cardiac contractility in prediabetic ob/ob(-/-) mice. Cardiovasc Diabetol. 18 (1), 16(2019).
- Huynh, K., et al. Coenzyme q10 attenuates diastolic dysfunction, cardiomyocyte hypertrophy and cardiac fibrosis in the db/db mouse model of type 2 diabetes. Diabetologia. 55 (5), 1544-1553 (2012).
- Moellmann, J., et al. Empagliflozin improves left ventricular diastolic function of db/db mice. Biochim Biophys Acta Mol Basis Dis. 1866 (8), 165807(2020).
- Ramirez, E., et al. Eplerenone attenuated cardiac steatosis, apoptosis and diastolic dysfunction in experimental type-ii diabetes. Cardiovasc Diabetol. 12, 172(2013).
- Fuentes-Antras, J., et al. Updating experimental models of diabetic cardiomyopathy. J Diabetes Res. 2015, 656795(2015).
- Riehle, C., Bauersachs, J. Of mice and men: Models and mechanisms of diabetic cardiomyopathy. Basic Res Cardiol. 114 (1), 2(2018).
- Zhao, S., Kusminski, C. M., Scherer, P. E. Adiponectin, leptin and cardiovascular disorders. Circ Res. 128 (1), 136-149 (2021).
- Parilla, J. H., Willard, J. R., Barrow, B. M., Zraika, S. A mouse model of beta-cell dysfunction as seen in human type 2 diabetes. J Diabetes Res. 2018, 6106051(2018).
- Wang, B., Chandrasekera, P. C., Pippin, J. J. Leptin- and leptin receptor-deficient rodent models: Relevance for human type 2 diabetes. Curr Diabetes Rev. 10 (2), 131-145 (2014).
- Vasanji, Z., Cantor, E. J., Juric, D., Moyen, M., Netticadan, T. Alterations in cardiac contractile performance and sarcoplasmic reticulum function in sucrose-fed rats is associated with insulin resistance. Am J Physiol Cell Physiol. 291 (4), C772-C780 (2006).
- Wright, J. J., et al. Mechanisms for increased myocardial fatty acid utilization following short-term high-fat feeding. Cardiovasc Res. 82 (2), 351-360 (2009).
- Flister, K. F. T., et al. Long-term exposure to high-sucrose diet down-regulates hepatic endoplasmic reticulum-stress adaptive pathways and potentiates de novo lipogenesis in weaned male mice. J Nutr Biochem. 62, 155-166 (2018).
- Kanwal, A., Pillai, V. B., Samant, S., Gupta, M., Gupta, M. P. The nuclear and mitochondrial sirtuins, sirt6 and sirt3, regulate each other's activity and protect the heart from developing obesity-mediated diabetic cardiomyopathy. FASEB J. 33 (10), 10872-10888 (2019).
- Winzell, M. S., Ahren, B. The high-fat diet-fed mouse: A model for studying mechanisms and treatment of impaired glucose tolerance and type 2 diabetes. Diabetes. 53 Suppl 3, S215-S219 (2004).
- Poucher, S. M., et al. Effects of saxagliptin and sitagliptin on glycaemic control and pancreatic beta-cell mass in a streptozotocin-induced mouse model of type 2 diabetes. Diabetes Obes Metab. 14 (10), 918-926 (2012).
- Islam, M. S., Loots Du, T. Experimental rodent models of type 2 diabetes: A review. Methods Find Exp Clin Pharmacol. 31 (4), 249-261 (2009).
- Heydemann, A. An overview of murine high fat diet as a model for type 2 diabetes mellitus. J Diabetes Res. 2016, 2902351(2016).
- Surwit, R. S., Kuhn, C. M., Cochrane, C., Mccubbin, J. A., Feinglos, M. N. Diet-induced type ii diabetes in c57bl/6j mice. Diabetes. 37 (9), 1163-1167 (1988).
- Clee, S. M., Attie, A. D. The genetic landscape of type 2 diabetes in mice. Endocr Rev. 28 (1), 48-83 (2007).
- Lee, J. Y., Kim, M. J., Moon, C. K., Chung, J. H. Degradation products of streptozotocin do not induce hyperglycemia in rats. Biochem Pharmacol. 46 (11), 2111-2113 (1993).
- Ozturk, N., Uslu, S., Ozdemir, S. Diabetes-induced changes in cardiac voltage-gated ion channels. World J Diabetes. 12 (1), 1-18 (2021).
- Bohne, L. J., Johnson, D., Rose, R. A., Wilton, S. B., Gillis, A. M. The association between diabetes mellitus and atrial fibrillation: Clinical and mechanistic insights. Front Physiol. 10, 135(2019).
Réimpressions et autorisations
