Nous présentons ici un protocole de transplantation de cellules à haute résolution spatiale et temporelle chez des embryons et des larves de poisson-zèbre à n’importe quel stade entre au moins 1 et 7 jours après la fécondation.
Article de méthode
Transplantation cellulaire à haute résolution chez le poisson-zèbre embryonnaire et larvaire
Dans cet article
Résumé
Résumé
Le développement et la régénération se produisent par un processus d’interactions cellulaires dynamiques, spatio-temporelles codées génétiquement. L’utilisation de la transplantation cellulaire entre animaux pour suivre le destin cellulaire et induire des décalages dans les propriétés génétiques, spatiales ou temporelles des cellules donneuses et hôtes est un moyen puissant d’examiner la nature de ces interactions. Des organismes tels que les poussins et les amphibiens ont apporté des contributions cruciales à notre compréhension du développement et de la régénération, respectivement, en grande partie en raison de leur facilité de transplantation. La puissance de ces modèles, cependant, a été limitée par une faible traçabilité génétique. De même, les principaux organismes modèles génétiques sont moins susceptibles d’être transplantés.
Le poisson-zèbre est un modèle génétique majeur pour le développement et la régénération, et bien que la transplantation cellulaire soit courante chez le poisson zèbre, elle est généralement limitée au transfert de cellules indifférenciées aux premiers stades de développement de la blastula et de la gastrula. Dans cet article, nous présentons une méthode simple et robuste qui permet d’étendre la fenêtre de transplantation du poisson-zèbre à tout stade embryonnaire ou larvaire entre au moins 1 et 7 jours après la fécondation. La précision de cette approche permet de transplanter aussi peu qu’une cellule avec une résolution spatiale et temporelle presque parfaite chez les animaux donneurs et hôtes. Bien que nous soulignions ici la transplantation de neurones embryonnaires et larvaires pour l’étude du développement et de la régénération nerveuses, respectivement, cette approche est applicable à un large éventail de types de cellules progénitrices et différenciées et de questions de recherche.
Introduction
La transplantation cellulaire a une longue et riche histoire en tant que technique fondamentale en biologie du développement. Au tournant duXXe siècle, des approches utilisant des manipulations physiques pour perturber le processus de développement, y compris la transplantation, ont transformé l’embryologie d’une science d’observation en une science expérimentale 1,2. Dans une expérience marquante, Hans Spemann et Hilde Mangold ont transplanté de manière ectopique la lèvre blastopore dorsale d’un embryon de salamandre sur le côté opposé d’un embryon hôte, induisant le tissu voisin à former un axe corporel secondaire3. Cette expérience a montré que les cellules pouvaient induire d’autres cellules à adopter certains destins, et par la suite, la transplantation s’est développée comme une méthode puissante pour interroger des questions critiques en biologie du développement concernant la compétence et la détermination du destin cellulaire, la lignée cellulaire, la capacité inductive, la plasticité et la puissance des cellules souches 1,4,5.
Des progrès scientifiques plus récents ont élargi la puissance de l’approche de la transplantation. En 1969, la découverte de Nicole Le Douarin selon laquelle la coloration nucléolaire pouvait distinguer les espèces d’origine dans les chimères de caille a permis de suivre les cellules transplantées et leur descendance6. Ce concept a ensuite été suralimenté par l’avènement des marqueurs fluorescents transgéniques et des techniques d’imagerie avancées5, et a été exploité pour suivre le destin cellulaire 6,7, identifier les cellules souches et leur puissance 8,9 et suivre les mouvements cellulaires pendant le développement du cerveau10. De plus, l’essor de la génétique moléculaire a facilité la transplantation entre hôtes et donneurs de génotypes distincts, soutenant une dissection précise des fonctions autonomes et non autonomes des facteurs de développement11.
La transplantation a également apporté d’importantes contributions à l’étude de la régénération, en particulier chez les organismes dotés de fortes capacités de régénération tels que les planaires et les axolotls, en élucidant les identités cellulaires et les interactions qui régulent la croissance et la structuration des tissus en régénération. Des études de transplantation ont révélé les principes de la puissance12, de la structuration spatiale13,14, des contributions de tissus spécifiques15,16 et des rôles de la mémoire cellulaire12,17 dans la régénération.
Le poisson-zèbre est un modèle de vertébré de premier plan pour l’étude du développement et de la régénération, y compris dans le système nerveux, en raison de ses programmes génétiques conservés, de sa traçabilité génétique élevée, de sa fécondation externe, de sa grande taille de couvée et de sa clarté optique 18,19,20. Les poissons-zèbres sont également très susceptibles d’être transplantés aux premiers stades de développement. L’approche la plus importante est la transplantation de cellules d’un embryon de donneur marqué à un embryon hôte au stade de blastula ou de gastrula pour générer des animaux mosaïques. Les cellules transplantées au stade de blastula se disperseront et se disperseront au début de l’épibole, produisant une mosaïque de cellules et de tissus marqués à travers l’embryon21. Les greffes de gastrula permettent de cibler les cellules transplantées selon une carte approximative du destin lorsque le bouclier se forme et que les axes A-P et D-V peuvent être déterminés21. Les mosaïques résultantes ont été précieuses pour déterminer si les gènes agissent de manière autonome entre les cellules, tester l’engagement cellulaire et cartographier le mouvement des tissus et la migration cellulaire tout au long du développement 5,11. Le poisson-zèbre mosaïque peut être généré de plusieurs manières, notamment l’électroporation22, la recombinaison23 et la transgenèse F024 et la mutagenèse25, mais la transplantation offre la plus grande manipulabilité et précision dans l’espace, le temps, le nombre et les types de cellules. L’état actuel de la transplantation de poisson-zèbre est largement limité aux cellules progénitrices à des stades précoces, à quelques exceptions près, notamment la transplantation de motoneurones spinaux26,27, de cellules ganglionnaires rétiniennes28,29 et de cellules de crête neurale dans les 10 à 30 premières heures suivant la fécondation (hpf)30, et de cellules hématopoïétiques et tumorales chez le poisson-zèbre adulte 5,31. L’extension des méthodes de transplantation à un large éventail d’âges, de stades de différenciation et de types de cellules augmenterait considérablement la puissance de cette approche pour fournir des informations sur les processus de développement et de régénération.
Ici, nous démontrons une technique flexible et robuste de transplantation cellulaire à haute résolution efficace chez les embryons et les larves de poisson-zèbre jusqu’à au moins 7 jours après la fécondation. Des poissons hôtes et donneurs transgéniques exprimant des protéines fluorescentes dans les tissus cibles peuvent être utilisés pour extraire des cellules uniques et les transplanter avec une résolution spatiale et temporelle presque parfaite. La clarté optique des embryons et des larves de poisson-zèbre permet d’imager en direct les cellules transplantées au fur et à mesure que l’animal hôte se développe ou se régénère. Cette approche a déjà été utilisée pour examiner comment la dynamique de signalisation spatio-temporelle influence l’identité neuronale et le guidage axonal chez l’embryon32, et pour examiner la logique par laquelle les facteurs intrinsèques et extrinsèques favorisent le guidage axonal pendant la régénération chez les poissons larvaires33. Bien que nous nous concentrions ici sur la transplantation de neurones différenciés, notre méthode est largement applicable aux types de cellules indifférenciées et différenciées à travers de nombreux stades et tissus pour répondre aux questions de développement et de régénération.
Protocole
Tous les aspects de cette procédure qui concernent le travail avec des poissons-zèbres vivants ont été approuvés par le Comité institutionnel de protection et d’utilisation des animaux de l’Université du Minnesota (IACUC) et sont effectués conformément aux directives de l’IACUC.
1. Configuration initiale unique de l’appareil de transplantation (Figure 1)
- Assemblez le microscope de transplantation selon les instructions du fabricant.
REMARQUE : Ce protocole utilise un microscope à fluorescence vertical avec un objectif d’immersion dans l’eau 40x. - Assemblez les micromanipulateurs grossiers et fins et montez-les sur le côté droit du microscope selon les instructions du fabricant.
REMARQUE : Parce qu’il est important que la platine ne se déplace pas dans la dimension Z par rapport à l’aiguille, nous utilisons un microscope à platine fixe avec les micromanipulateurs montés sur la base du microscope. Si un microscope à platine fixe n’est pas disponible, le micromanipulateur peut être monté sur la platine. - Fixez le support de microélectrode à la poignée de l’électrode et montez-le sur le micromanipulateur.
- Connectez un côté du robinet d’arrêt à trois voies à la pompe à microseringue. Connectez l’autre côté du robinet d’arrêt au tube en polyéthylène à l’aide de l’adaptateur de chromatographie.
- Connectez le côté opposé du tube en polyéthylène au porte-microélectrode à l’aide de l’adaptateur de chromatographie.
- Remplissez la seringue réservoir de 10 ml d’huile minérale légère et montez-la sur la face supérieure du robinet d’arrêt.
- Remplissez la pompe à microseringue et le tube (la conduite hydraulique) avec de l’huile minérale du réservoir, en veillant à éliminer toutes les bulles d’air.
REMARQUE : Une fois l’appareil installé, il ne nécessitera qu’un entretien occasionnel de la conduite hydraulique. La seringue réservoir peut être retirée et remplie d’huile minérale si nécessaire.
2. Préparez des pousseurs d’embryons.
- Coupez un morceau de fil de pêche de 2 cm et insérez-le partiellement dans l’extrémité étroite d’une pointe de pipette P1000, en laissant ~1,5 cm exposé. Fixez la ligne de pêche avec une petite goutte de superglue et laissez sécher.
3. Préparez des solutions.
- Pour préparer de l’agarose à 1 % à bas point de fusion dissoute dans un milieu embryonnaire (LMA), dissolvez l’agarose dans un milieu embryonnaire bouillant34. Préparez des aliquotes de 1 à 2 mL dans des tubes à essai à fond rond et conservez-les à 4 °C.
- Préparez la solution de Ringer avec de la pénicilline-streptomycine et de la tricaïne (RPT) en combinant les ingrédients suivants à des concentrations finales de 116 mM de NaCl, 2,9 mM de KCl, 1,8 mM de CaCl2, 5 mM de HEPES pH 7,2, 50 unités/mL de pénicilline et 50 ug/mL de streptomycine, en remuant jusqu’à dissolution et en passant à travers un filtre sous vide. Conserver à température ambiante. Ajouter la tricaïne immédiatement avant l’utilisation à une concentration de 0,02 %.
4. Préparez les animaux donneurs et hôtes à la transplantation.
- Élevez des animaux hôtes et donneurs des génotypes appropriés, et avec des cellules d’intérêt marquées par fluorescence, jusqu’à l’âge désiré.
REMARQUE : Pour ces greffes, nous avons utilisé des animaux donneurs Tg(isl1 :EGFPCAAX)fh474 32 et des animaux hôtes Tg(isl1 :mRFP)fh1 35 et des neurones transplantés de noyaux moteurs vagues du donneur à l’hôte à 3dpf. - Préparez les lames de transplantation en appliquant un contour rectangulaire de vernis à ongles transparent sur chaque lame de verre (Figure 2A). Le vernis à ongles crée une barrière hydrophobe pour retenir le RPT ajouté à l’étape 4.8. Laisser sécher complètement avant utilisation.
REMARQUE : Les diapositives peuvent être préparées à l’avance et stockées indéfiniment. - Faites fondre une aliquote de LMA en plaçant un tube de LMA dans un bécher de 50 ml contenant 40 ml d’eau et en le faisant cuire au micro-ondes pendant 1 minute à 50 % de puissance ou jusqu’à ce qu’il soit fondu. Maintenir la LMA à 40 °C dans un chauffe-bain sec.
- Déchorionnez les animaux hôtes et donneurs à l’aide de pinces (le cas échéant) et anesthésiez-les en les plaçant dans de petites boîtes de Pétri remplies de RPT à température ambiante. Attendez 5 minutes que les animaux soient complètement anesthésiés avant de continuer.
- Montez les animaux donneurs et hôtes individuels : à l’aide d’une pipette Pasteur et d’une pompe à pipette, transférez les animaux de la RPT à la LMA, puis transférez les animaux en petites gouttes de LMA sur des lames à l’intérieur du contour du vernis à ongles. Réduire au minimum la quantité de RTT transférée dans la DMT afin que celle-ci ne se dilue pas. Avant que le LMA ne se solidifie, utilisez un poussoir d’embryons pour orienter les animaux, en vous assurant que chaque animal est monté avec le site d’insertion de l’aiguille prévu à droite, et que tous les animaux sont alignés verticalement (figure 2B) ; Laisser l’agarose prendre complètement (~5 min) avant de continuer.
REMARQUE : Étant donné que de nombreuses cellules peuvent être prélevées sur chaque animal donneur, il est plus efficace de monter 2 à 4 animaux hôtes avec un donneur sur chaque lame. - À l’aide d’un scalpel, coupez une tranche verticale droite à travers toutes les gouttes d’agarose juste à droite des animaux montés (figure 2C). Retirez l’agarose en vrac de la lame avec des lingettes de laboratoire.
- À l’aide d’un scalpel, découpez des coins dans l’agarose pour exposer le site d’insertion de l’aiguille (figure 2C). Retirez l’agarose en vrac de la lame avec des lingettes de laboratoire.
- Appliquez le RPT sur la lame jusqu’à ce que les gouttes d’agarose soient complètement immergées (figure 2D).
- Montez la lame préparée sur le microscope de transplantation. Mettez l’accent sur l’animal donneur sous l’objectif 40x. Pour ce faire, abaissez l’objectif jusqu’à ce qu’il brise la surface du support, puis élevez l’objectif au plan focal souhaité.
REMARQUE : Le contact avec le liquide par l’objectif doit être maintenu jusqu’à ce que la transplantation soit terminée (figure 3C). - Mettre au point la ou les cellules donneuses d’intérêt marquées par fluorescence ; Ensuite, déplacez la platine vers la gauche en préparation de la localisation de l’aiguille de greffe.
REMARQUE : À ce stade, n’ajustez pas le microscope sur les axes Y ou Z, pour vous assurer que vous pouvez facilement retrouver l’animal donneur dans la section 5.
5. Préparez l’aiguille de greffe.
- Insérez une micropipette dans l’extracteur de micropipette et tirez une aiguille de micro-injection.
REMARQUE : La forme de l’aiguille doit être similaire à celles utilisées pour les injections d’embryons de poisson-zèbre au stade 1 cellule ou le clampage par patch. Nous utilisons un extracteur de micropipette avec le programme suivant : PRESSION = 500, CHALEUR = rampe + 80, TRACTION = 90, VITESSE = 70, TEMPS = 250 (voir le tableau des matériaux), bien que les paramètres corrects pour chaque extracteur devront probablement être déterminés empiriquement. - Alignez la pointe de l’aiguille avec les divisions du micromètre de la platine sous une lunette de dissection. En utilisant le micromètre comme guide de mesure, utilisez une paire de pinces aiguisées pour casser l’aiguille à une taille d’alésage légèrement supérieure au diamètre des cellules d’intérêt (Figure 3A). Assurez-vous que la cassure est aussi propre que possible, car les bords déchiquetés peuvent contribuer au colmatage de l’aiguille. REMARQUE : Pour les motoneurones vagues (5-7 μm de diamètre), les aiguilles doivent être cassées à un diamètre intérieur de 10 μm, ce qui correspond à un diamètre extérieur de 20 μm. Si nécessaire, la taille, la forme et/ou l’angle de la pointe de l’aiguille peuvent être affinés à l’aide d’une microforge ou d’un microbroyeur36.
- À l’aide d’une seringue de 50 mL remplie d’huile minérale légère et équipée d’une remplisseuse de pipette, remplissez complètement l’aiguille d’huile minérale (figure 3B). Assurez-vous qu’il n’y a pas de bulles d’air. Mettez l’aiguille remplie de côté jusqu’à ce qu’elle soit prête à être montée.
REMARQUE : Pour vous assurer qu’il n’y a pas de bulles d’air, insérez le remplisseur de pipette à fond dans l’aiguille et libérez l’huile tout en retirant lentement le remplissage hors de l’aiguille. - Sur l’appareil de transplantation, tournez le robinet d’arrêt à trois voies de manière à ce que son bras long fasse face à la pompe à microseringue et appuyez sur le piston de la seringue à réservoir pour évacuer toutes les bulles d’air de la conduite hydraulique. Maintenez une légère pression sur le piston (pour éviter le reflux d’air dans la conduite) et tournez le robinet d’arrêt à trois voies de manière à ce que son long bras fasse face à la seringue à réservoir.
- Insérez l’aiguille dans le support en prenant soin de ne pas introduire de bulles d’air. Ajustez l’angle de l’aiguille de manière à ce qu’elle soit orientée directement vers la gauche à un angle de 10 à 15° par rapport à l’horizontale (Figure 3C).
- À l’aide des micromanipulateurs grossiers et fins, on peut manœuvrer la pointe de l’aiguille sous l’objectif du microscope et la mettre au point (figure 3D).
REMARQUE : Le positionnement grossier de l’aiguille dans les plans X et Y peut être effectué en observant directement la zone sous l’objectif pendant que vous manœuvrez l’aiguille, car l’aiguille réfléchira le faisceau de lumière transmise lorsqu’elle est positionnée sous l’objectif. Les oculaires du microscope peuvent ensuite être utilisés pour un positionnement précis. Ne réglez pas la position de la platine du microscope ou la mise au point pendant cette étape. Utilisez les micromanipulateurs pour amener la pointe de l’aiguille dans la position focale existante. - Si du liquide s’écoule à l’intérieur ou à l’extérieur de l’extrémité de l’aiguille, ajustez la pression à l’aide du pousse-seringue jusqu’à ce qu’un ménisque stable entre l’huile minérale et la solution de Ringer soit observé (figure 3D).
REMARQUE : Si une bulle d’huile reste à la pointe de l’aiguille après la stabilisation, elle peut être retirée en utilisant le réglage du plan X sur le micromanipulateur grossier pour déplacer l’aiguille vers la droite jusqu’à ce que sa pointe ait été retirée du RPT, puis de nouveau vers la gauche jusqu’à ce qu’elle soit repositionnée sous l’objectif.
6. Transplantation
REMARQUE : Tous les mouvements de l’aiguille doivent être effectués à l’aide du micromanipulateur fin de cette section.
- Déplacez la platine vers la droite jusqu’à ce que l’animal donneur soit ramené dans le champ de vision, en faisant attention d’éviter toute pénétration accidentelle avec l’aiguille.
- Recentrez et concentrez-vous sur les cellules à transplanter et alignez l’aiguille avec les cellules situées juste à l’extérieur de l’animal (Figure 4A).
REMARQUE : Vous devrez peut-être basculer souvent entre le fond clair et la fluorescence pour assurer un bon alignement. L’utilisation d’un filtre à densité neutre peut aider à visualiser les deux simultanément. - Insérez l’aiguille dans l’animal donneur.
REMARQUE : Des mouvements répétés d’entrée et de sortie avec l’aiguille peuvent aider à pénétrer la peau. - Restabilisez immédiatement le ménisque d’huile dans la pointe de l’aiguille à l’aide de la pompe à microseringue, comme décrit à l’étape 5.7.
- Positionnez la pointe de l’aiguille contre les cellules d’intérêt et appliquez une légère aspiration à l’aide de la pompe à microseringue (Figure 4B).
REMARQUE : De légers mouvements d’entrée et de sortie pendant l’aspiration peuvent aider à desserrer les cellules. - Lorsqu’un nombre adéquat de cellules a été prélevé, retirez l’aiguille du donneur et stabilisez immédiatement le ménisque d’huile dans l’extrémité de l’aiguille à l’aide de la pompe à microseringue.
- En prenant soin d’éviter de contacter les animaux ou l’agarose avec l’aiguille, repositionnez la platine pour faire apparaître le premier animal hôte.
- Centrez et concentrez-vous sur la zone dans laquelle les cellules doivent être placées et alignez l’aiguille avec cette région juste à l’extérieur de l’animal (Figure 4C).
- Insérez l’aiguille dans l’animal hôte et restabilisez immédiatement le ménisque d’huile dans la pointe de l’aiguille avec la pompe à microseringue.
- Positionnez l’extrémité de l’aiguille dans le site de dépôt et appliquez une légère pression avec le tire-microseringue jusqu’à ce que le nombre correct de cellules donneuses soit libéré de l’aiguille (figure 4D).
REMARQUE : Si les cellules du donneur et de l’hôte sont marquées avec des fluorophores différents, un filtre multibande permettant une visualisation simultanée peut être très utile à ce stade. - Retirez l’aiguille de l’hôte et stabilisez immédiatement le ménisque d’huile dans la pointe de l’aiguille à l’aide de la pompe à microseringue.
- Répétez les étapes 6.7 à 6.11 pour tous les hôtes restants.
7. Récupération de l’animal hôte
- Soulevez l’objectif 40x et utilisez le micromanipulateur grossier pour ramener l’aiguille en position de chargement.
REMARQUE : L’aiguille peut être réutilisée pour plusieurs lames. - Retirez la lame du microscope de transplantation et placez-la sous un microscope de dissection.
- Démontez les animaux hôtes en les retirant soigneusement de la chute LMA à l’aide d’une pince. À l’aide d’une pipette Pasteur en verre, transférez les animaux hôtes dans un plat contenant une solution fraîche de Ringer avec de la pénicilline/streptomycine. Assurez-vous que les animaux se remettent de l’anesthésie et maintenez-les dans un incubateur d’embryons jusqu’à ce qu’ils soient prêts à imager. Euthanasier les animaux donneurs selon les protocoles approuvés.
REMARQUE : Notre méthode d’euthanasie consiste à immerger les animaux dans un bain de glace pendant au moins 1 heure, suivi d’une immersion dans de l’hypochlorite de sodium à 500 mg/L.
Résultats
Les résultats des expériences de transplantation sont directement observés en visualisant des cellules donneuses marquées par fluorescence chez des animaux hôtes à des moments appropriés après la transplantation à l’aide d’un microscope à fluorescence. Ici, nous avons transplanté des neurones vagues antérieurs individuels à 3 dpf. Les animaux hôtes ont ensuite été incubés pendant 12 ou 48 h, anesthésiés, montés dans le LMA sur une lamelle de verre et imagés au microscope confocal (figure 5). À 12 h après la transplantation (hpt), nous observons un neurone donneur transplanté avec succès (Figure 5A). Nous pouvons confirmer le positionnement correct de la cellule, car elle est située parmi les neurones vagues de l’hôte dans la région antérieure du noyau moteur du vague de l’hôte ; la cellule semble également intacte et saine, comme l’indique l’extension de plusieurs courtes protubérances de neurites (Figure 5A). 2 jours après la transplantation (dpt), nous pouvons à nouveau confirmer qu’un seul neurone a été transplanté avec succès dans la bonne position du noyau hôte (Figure 5B). À ce stade, nous observons que le neurone a prolongé un nouvel axone jusqu’au 4ème arc pharyngé (Figure 5B). L’observation directe révèle également quand la procédure a échoué. Dans cet exemple, nous observons un hôte 2 dpt dans lequel aucun neurone donneur n’est présent ; au contraire, une petite tache verte, probablement un fragment d’un neurone d’un donneur mort après la transplantation, est apparente (figure 5C). Bien que les taux de réussite des greffes varient en fonction de l’expérience de l’utilisateur et du nombre et du type de cellules transplantées, nous constatons un taux de réussite (défini comme la présence d’un neurone survivant qui a prolongé un axone dans l’hôte à 2-3 dpt) de 66 % (n = 453 greffes) pour les greffes de motoneurones vagues effectuées à 3-4 dpf33.
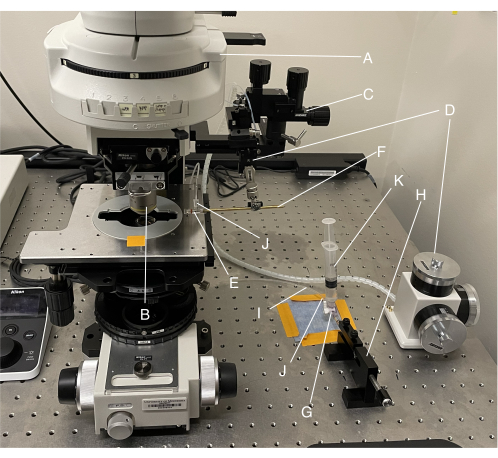
Figure 1 : Vue d’ensemble de l’appareil de transplantation. (A) Microscope à fluorescence droit ; (B) 40x objectif d’immersion dans l’eau ; (C) micromanipulateur grossier ; (D) micromanipulateur fin ; (E) porte-microélectrode ; (F) poignée d’électrode ; (G) robinet d’arrêt à trois voies ; (H) pompe à microseringue ; (I) tubes en polyéthylène ; (J) adaptateurs de chromatographie ; (K) Seringue à réservoir de 10 ml. Veuillez cliquer ici pour voir une version agrandie de cette figure.
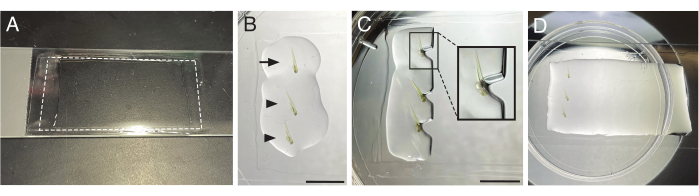
Figure 2 : Montage d’animaux pour la transplantation. (A) Une lame de verre dépoli de 3 pouces x 1 pouce avec du vernis à ongles transparent appliqué dans un contour rectangulaire (ligne pointillée). (B) Animaux donneurs (flèche) et hôtes (pointe de flèche) montés dans des gouttes d’agarose, alignés verticalement avec le site cible de la transplantation (cerveau postérieur) orienté vers la droite. (C) Agarose avec bord droit et coins découpés pour exposer le site cible de la transplantation. Encart : zoom de la région encadrée. (D) Lame de transplantation inondée de solution de Ringer avec de la pénicilline-streptomycine et de la tricaïne. Barres d’échelle = 5 mm. Veuillez cliquer ici pour voir une version agrandie de cette figure.
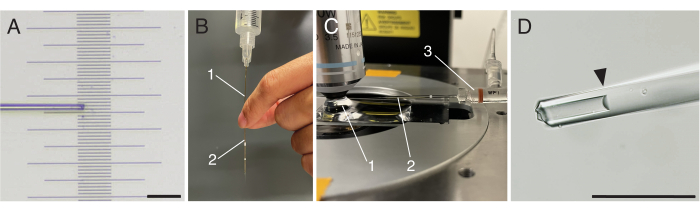
Figure 3 : Préparation de l’aiguille de transplantation. (A) Aiguille de transplantation cassée au sommet d’un micromètre de scène. (B) Remplisseuse de pipette (1) insérée dans l’aiguille de transplantation (2) pour remplir l’aiguille d’huile minérale. (C) Préparation de la lame de transplantation et aiguille en place sur le microscope de transplantation. 1 : Arroser le ménisque entre l’objectif de trempage 40x et la lame inondée 2 : Aiguille de transplantation 3 : Porte-microélectrode. (D) Pointe d’une aiguille de transplantation cassée avec un ménisque d’huile stable (pointe de flèche) vue au microscope de transplantation à un grossissement de 40x. Barres d’échelle = 100 μm Veuillez cliquer ici pour voir une version plus grande de cette figure.
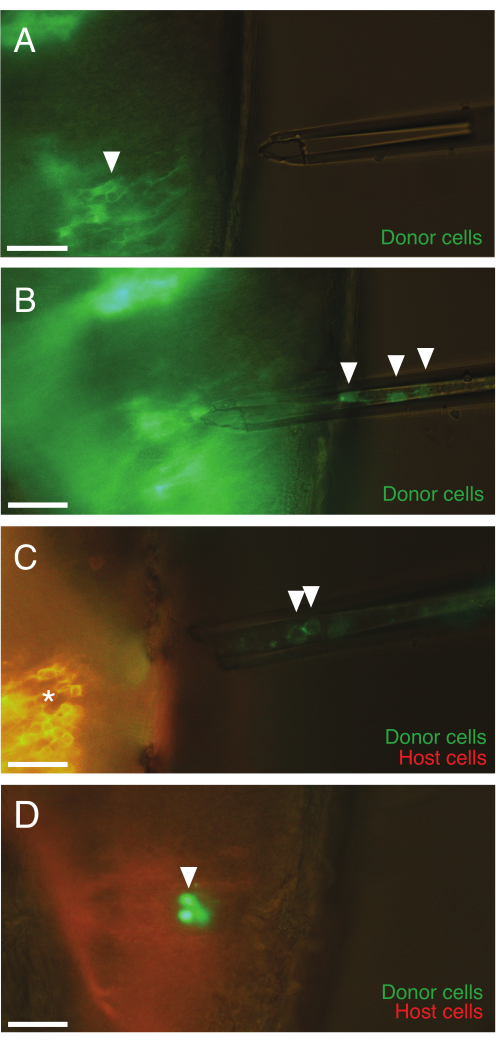
Figure 4 : Le processus de transplantation au microscope. (A) Aiguille positionnée à l’extérieur de l’animal donneur, visant les motoneurones vagues (vert, pointe de flèche). (B) Aiguille positionnée à l’intérieur de l’animal donneur après avoir absorbé les neurones donneurs marqués par fluorescence (pointes de flèches). (C) Aiguille contenant plusieurs neurones donneurs (pointes de flèches) positionnés à l’extérieur de l’animal hôte, visant les motoneurones vagues antérieurs de l’hôte (rouge, astérisque). (D) Animal hôte après la transplantation avec l’aiguille retirée. Un groupe de neurones de donneurs transplantés exprimant la GFP (pointe de flèche) a été expulsé dans l’hôte. Barres d’échelle = 30 μm Veuillez cliquer ici pour voir une version plus grande de cette figure.
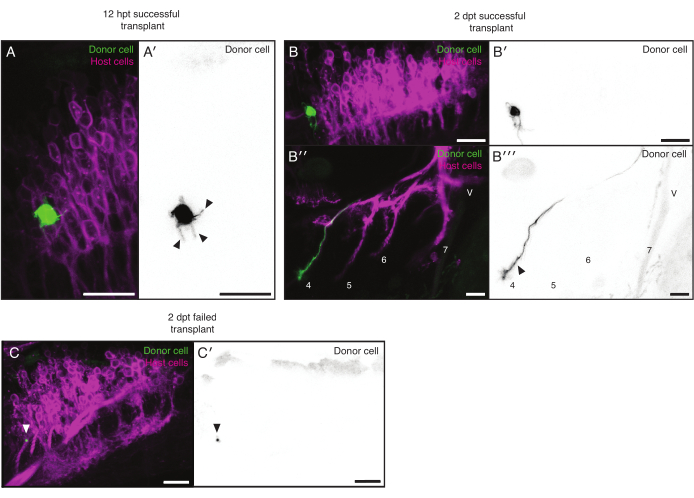
Figure 5 : Résultats représentatifs. (A,B) Des greffes réussies. (A) La région antérieure d’un noyau moteur vague hôte de 12 hpt (magenta) contenant un neurone donneur (vert, noir dans A'). Le neurone donneur a étendu plusieurs neurites (flèches en A'). (B) Le noyau moteur vague (B-B') et les branches axonales pharyngées (B''-B''', branches axonales étiquetées) d’un hôte 2 dpt (magenta) contenant un neurone donneur (vert, noir en B', B'''). Le neurone donneur a étendu un nouvel axone à la branche 4 (pointes de flèches). Les figures 5A, B représentent différents animaux. (C) Greffe infructueuse. Le noyau moteur vague d’un hôte de 2 dpt (magenta). Aucun neurone donneur n’est présent ; au contraire, une petite tache (verte, noire en C'), représentant probablement un fragment d’un neurone donneur mort (pointe de flèche), est présente. Barres d’échelle = 20 μm. Abréviations : dpt = jours après la transplantation ; HPT = heures après la transplantation. Veuillez cliquer ici pour voir une version agrandie de cette figure.
Discussion
Depuis plus d’un siècle, la biologie du développement et de la régénération s’appuie sur des expériences de transplantation pour examiner les principes de signalisation cellulaire et la détermination du destin cellulaire. Le modèle du poisson-zèbre représente déjà une puissante fusion d’approches génétiques et de transplantation. La transplantation aux stades de blastula et de gastrula pour générer des animaux en mosaïque est courante, mais limitée dans les types de questions qu’elle peut aborder. La transplantation à un stade ultérieur est rare, bien que des méthodes de transplantation de motoneurones spinaux embryonnaires et de cellules ganglionnaires rétiniennes à 16-18 hpf et 30-33 hpf, respectivement, aient été signalées 26,27,28. S’inspirant de ces efforts précédents, ce travail renforce encore la puissance de la transplantation de poisson-zèbre en décrivant une approche applicable aux stades embryonnaires et larvaires tardifs, ouvrant la porte à son utilisation dans les études de régénération, et qui intègre des approches transgéniques fluorescentes modernes pour améliorer le marquage, le transfert et le suivi à long terme des cellules.
Ce protocole offre de nouvelles opportunités pour transplanter des cellules de différents stades de différenciation et d’âges, y compris dans le contexte régénératif. Par exemple, la transplantation de neurones différenciés a été utilisée pour examiner comment la dynamique de signalisation affecte l’identité neuronale en modifiant les contextes spatiaux et temporels dans lesquels les neurones se développent32 ; examiner le moment de la détermination neuronale26 ; comme moyen de blesser les axones et de suivre leur repousse avec une résolution de33 sur une seule cellule ; examiner le rôle autonome cellulaire d’un récepteur lors de la régénération axonale via des greffes de type mutant-sauvage33 ; et d’examiner le rôle de la mémoire cible dans le guidage axonal régénératif33. Bien que nous nous soyons jusqu’à présent concentrés sur la transplantation neuronale, nous ne connaissons aucune caractéristique des neurones qui les rend particulièrement adaptés à cette approche ; Nous pensons plutôt que cette approche est applicable à de nombreux types de cellules. Nous espérons et nous nous attendons à ce que les chercheurs trouvent des moyens créatifs d’examiner la dynamique du développement et de la régénération dans de nombreux contextes en utilisant cette technique.
Les considérations essentielles dans ce protocole comprennent la sélection des marqueurs cellulaires, l’adéquation des cellules pour la transplantation et l’accessibilité des tissus. Une étiquette fluorescente brillante, stable et permanente pour les cellules du donneur est importante pour faciliter à la fois la transplantation et le suivi ultérieur. Des colorants injectés et des transgènes peuvent être utilisés, bien que les transgènes puissent être plus permanents et plus spécifiques aux cellules d’intérêt. La résistance au photoblanchiment prolonge également le temps que l’on peut prendre pour effectuer la transplantation. Les cellules du donneur doivent être suffisamment adhérentes et de forme appropriée pour être aspirées dans l’aiguille à partir du tissu environnant/matrice extracellulaire sans dommages excessifs. Les modifications pour différents types de cellules comprennent l’ajustement de la taille de l’alésage de l’aiguille, qui doit être légèrement plus grande que le diamètre de la cellule d’intérêt ; orienter correctement l’animal pendant le montage pour faciliter l’accès aux cellules d’intérêt ; et l’optimisation du niveau d’aspiration ou de perturbation physique nécessaire pour desserrer et remonter les cellules. Au fur et à mesure que l’animal vieillit, certains tissus peuvent devenir visuellement et/ou physiquement inaccessibles, bien que nous ne connaissions pas de limites d’âge spécifiques. Par exemple, le crâne finira probablement par limiter l’accès aux neurones. Les modifications peuvent inclure l’utilisation d’animaux non pigmentés pour visualiser plus facilement les tissus internes, ou la réalisation de petites incisions préliminaires, des ajustements de l’épaisseur du tube microcapillaire ou la forme de l’aiguille tirée pour faciliter l’entrée de l’aiguille.
Les limites de ce protocole comprennent des cellules de certains types et âges qui ne se prêtent pas à la transplantation, comme décrit ci-dessus, et la difficulté de maintenir les structures au niveau des tissus pendant la transplantation. Parce que cette procédure nécessite que les cellules individuelles soient dissociées de leur environnement lors de l’élimination, les interactions cellule-cellule et les structures d’ordre supérieur seront perdues. Le système immunitaire inné, qui devient fonctionnel au cours de l’embryogenèse, peut réagir à des lésions tissulaires ou à la présence de cellules mortes et de débris sur le site de transplantation, ce qui pourrait affecter la survie des cellules du donneur37,38. Aux stades ultérieurs, les cellules du donneur peuvent également être rejetées par le système immunitaire adaptatif, qui devient fonctionnel 3 à 6 semaines après la fécondation39,40. Ce problème peut être évité en transplantant dans des hôtes dépourvus d’immunité adaptative ou innée 41,42,43,44.
Les difficultés potentielles avec le protocole qui peuvent nécessiter un dépannage sont les suivantes : Tout d’abord, le matériau à l’intérieur de l’aiguille doit se déplacer de manière douce et réactive pendant l’aspiration et la pression. Un mouvement saccadé et incohérent est probablement causé par la présence de bulles d’air dans la conduite hydraulique ou un sabotage partiel de l’aiguille ; Par conséquent, des précautions doivent être prises pour éliminer toutes les bulles d’air de l’aiguille et de la conduite hydraulique lors de l’installation. Si des bulles d’air sont trouvées, remettez l’aiguille en position de chargement à l’aide du micromanipulateur grossier, retirez l’aiguille du support et rincez l’aiguille et alignez-la avec de l’huile minérale avant de la remonter. L’obstruction de l’aiguille peut être atténuée en évitant les ruptures d’aiguille déchiquetées. Les obstructions peuvent parfois être résolues en expulsant l’huile minérale de la pointe de l’aiguille pour repousser l’obstruction ou en rétractant complètement puis en réinsérant l’aiguille dans le RPT ; Sinon, une nouvelle aiguille doit être utilisée. Deuxièmement, il peut être difficile de desserrer les cellules lors de l’ablation. Casser la pointe de l’aiguille à un angle pour une forme biseautée, déplacer l’aiguille d’avant en arrière pendant l’aspiration et ajuster la force d’aspiration peut aider à desserrer les cellules pour le détachement des tissus. Un microbroyeur peut également être utilisé pour préparer des aiguilles biseautées avec une taille d’ouverture spécifique et un anglede 36. Enfin, il peut y avoir des dommages aux cellules lors du retrait. Les cellules gravement endommagées peuvent perdre leur forme définie et apparaître sous la forme de petits fragments ou de taches fluorescentes amorphes dans l’aiguille d’injection. L’incapacité des cellules à survivre après la greffe peut également être une indication de dommages et peut être facilement dosée par l’absence de cellules marquées par fluorescence chez l’hôte. Le dépannage des dommages répétés aux cellules peut inclure l’augmentation de la taille de l’alésage de l’aiguille et la limitation de la quantité d’aspiration appliquée pour réduire la force de cisaillement. Une aiguille partiellement bouchée peut également augmenter les forces de cisaillement, entraînant des dommages.
Déclarations de divulgation
Les auteurs n’ont aucun conflit d’intérêts à divulguer.
Remerciements
Nous remercions Cecilia Moens pour sa formation en transplantation de poisson-zèbre ; Marc Tye pour d’excellents soins aux poissons ; et Emma Carlson pour ses commentaires sur le manuscrit. Ce travail a été soutenu par une subvention du NIH NS121595 à A.J.I.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 10 mL « seringue à réservoir" | Fisher Scientific | 14-955-459 | |
| Filtre à vide jetable de 150 mL, .2 µ ; m, PES | Corning | 431153 | |
| 20 x 12 mm Bloc chauffant | Corning | 480122 | |
| robinet d’arrêt 3 voies | Braun Medical Inc. | ||
| 3 x 1 Lame en verre dépoli | VWR | 48312-004 | |
| Objectif de trempage à l’eau 40x | Nikon | MRD07420 | |
| Chlorure de calcium dihydraté | Sigma-Aldrich | C3306 | |
| Manipulateur grossier | Narishige | MN-4 | |
| Pompe à microseringue personnalisée | Université de l’Oregon | N/A | Fabriqué par l’atelier d’usinage de l’Université de l’Oregon (tsa.uoregon@gmail.com). Une alternative disponible dans le commerce est répertoriée ci-dessous. |
| Dumont #5 Forceps | Fine Science Tools | 1129500 | |
| Eclipse FN1 « Microscope de transplantation" | Nikon | N/A | |
| Poignée d’électrode | World Precision Instruments | 5444 | |
| Lame chirurgicale stérile à plumes, #11 | VWR | 21899-530 | |
| Micromanipulateur fin, Hydraulique à huile à trois axes ; | Narishige | MMO-203 | |
| HEPES pH 7.2 | Sigma-Aldrich | H3375-100G | |
| Haute Précision #3 Style Scalpel Handle | Fisher Scientific | 12-000-163 | |
| Kimble Pipette Pasteur jetable en borosilicate, pointe large, 5.75 in | DWK Life Sciences | 63A53WT | |
| Adaptateur de chromatographie KIMBLE ; | DWK Life Sciences | 420408-0000 | |
| Kimwipes | Kimberly-Clark Professional | 34120 | |
| Huile minérale légère | Sigma-Aldrich | M3516-1L | |
| LSE chauffage numérique à bain sec, 1 bloc, 120 V | Corning | 6875SB | |
| Pompe à microseringue manuelle | World Precision Instruments | MMP | Alternative commerciale à la pompe à microseringue sur mesure |
| Porte-microélectrodes | World Precision Instruments | MPH310 | |
| MicroFil Pipette Filler | World Precision Instruments | MF28G67-5 | |
| Vernis à ongles | Electron MIcroscopy Sciences | 72180 | |
| Eau sans nucléase | VWR | 82007-334 | |
| P-97 Extracteur de micropipette de type flamant/brun | Sutter Instruments | P-97 | |
| Pénicilline-streptomycine | Sigma-Aldrich | p4458-100ML | 5 000 unités de pénicilline et 5 mg de streptomycine/mL |
| Pompe pipette 10 mL | Bel-Art | 37898-0000 | |
| Chlorure de potassium | Sigma-Aldrich | P3911 | |
| Professional Super Glue | Loctite | LOC1365882 | |
| Tubes à essai en polystyrène à fond rond | Falcon | 352054 | |
| Chlorure de sodium | Sigma-Aldrich | S9888 | |
| Micromètre de platine | Meiji Techno America | MA285 | |
| Seringues sans aiguille, 50 mL | BD Medical | 309635 | |
| Tricaïne Méthanosulfonate | Syndel USA | SYNCMGAUS03 | |
| Trilene XL smooth casting Ligne de pêche | Berkley | XLFS6-15 | |
| Tubes en polyéthylène n° 205 | BD Medical | 427445 | |
| UltraPure Low Melting Point Agarose | Invitrogen | 16520050 | |
| Micropipettes calibrées Wiretrol II | Drummond | 50002010 |
Références
- Solini, G. E., Dong, C., Saha, M. Embryonic transplantation experiments: Past, present, and future. Trends Dev Biol. 10, 13-30 (2017).
- Gilbert, S. F. A Conceptual History of Modern Embryology. , Springer. New York, NY. (1991).
- Spemann, H., Mangold, H. Induction of embryonic primordia by implantation of organizers from a different species. 1923. Int J Dev Biol. 45 (1), 13-38 (2001).
- Kretzschmar, K., Watt, F. M. Lineage Tracing. Cell. 148 (1), 33-45 (2012).
- Gansner, J. M., Dang, M., Ammerman, M., Zon, L. I. Chapter 22 - Transplantation in zebrafish. Methods in Cell Biol. 138, 629-647 (2017).
- Le Douarin, N. Details of the interphase nucleus in Japanese quail (Coturnix coturnix japonica). Bull Biol Fr Belg. 103 (3), 435-452 (1969).
- Ho, R. K. Cell movements and cell fate during zebrafish gastrulation. Dev Suppl. , 65-73 (1992).
- Le Douarin, N. M. Developmental patterning deciphered in avian chimeras. Development, Growth & Differentiation. 50, S11-S28 (2008).
- Wagner, D. E., Wang, I. E., Reddien, P. W. Clonogenic neoblasts are pluripotent adult stem cells that underlie planarian regeneration. Science. 332 (6031), 811-816 (2011).
- Balaban, E., Teillet, M. A., Le Douarin, N. Application of the quail-chick chimera system to the study of brain development and behavior. Science. 241 (4871), 1339-1342 (1988).
- Carmany-Rampey, A., Moens, C. B. Modern mosaic analysis in the zebrafish. Methods. 39 (3), 228-238 (2006).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- Rojo-Laguna, J. I., Garcia-Cabot, S., Saló, E. Tissue transplantation in planarians: A useful tool for molecular analysis of pattern formation. Semin Cell Dev Biol. 87, 116-124 (2019).
- Tanaka, E. M. The molecular and cellular choreography of appendage regeneration. Cell. 165 (7), 1598-1608 (2016).
- Hu, Y., et al. Muscles are barely required for the patterning and cell dynamics in axolotl limb regeneration. Front Genet. 13, 1036641(2022).
- Wells, K. M., Kelley, K., Baumel, M., Vieira, W. A., McCusker, C. D. Neural control of growth and size in the axolotl limb regenerate. Elife. 10, e68584(2021).
- Otsuki, L., Tanaka, E. M. Positional memory in vertebrate regeneration: a century's insights from the salamander limb. Cold Spring Harb Perspect Biol. 14 (6), e040899(2022).
- de Abreu, M. S., et al. Zebrafish as a model of neurodevelopmental disorders. Neuroscience. 445, 3-11 (2020).
- Alper, S. R., Dorsky, R. I. Unique advantages of zebrafish larvae as a model for spinal cord regeneration. Front Mol Neurosci. 15, 983336(2022).
- Blader, P., Strähle, U. Zebrafish developmental genetics and central nervous system development. Hum Mol Genet. 9 (6), 945-951 (2000).
- Kemp, H. A., Carmany-Rampey, A., Moens, C. Generating chimeric zebrafish embryos by transplantation. J Vis Exp. (29), e1394(2009).
- Boulanger-Weill, J., et al. Functional interactions between newborn and mature neurons leading to integration into established neuronal circuits. Curr Biol. 27 (12), 1707-1720 (2017).
- Dong, J., Stuart, G. W. Transgene manipulation in zebrafish by using recombinases. Methods Cell Biol. 77, 363-379 (2004).
- Kawakami, K., Shima, A., Kawakami, N. Identification of a functional transposase of the Tol2 element, an Ac-like element from the Japanese medaka fish, and its transposition in the zebrafish germ lineage. Proc Natl Acad Sci U S A. 97 (21), 11403-11408 (2000).
- Hwang, W. Y., et al. Efficient genome editing in zebrafish using a CRISPR-Cas system. Nat Biotechnol. 31 (3), 227-229 (2013).
- Elsen, J. S. Determination of primary motoneuron identity in developing zebrafish embryos. Science. 252 (5005), 569-572 (1991).
- Elsen, J. Chapter 5 - Cellular methods: detailed procedure for transplanting single cells. The Zebrafish Book. , (2000).
- Poulain, F. E., Gaynes, J. A., Stacher Hörndli, C., Law, M. -Y., Chien, C. -B. Analyzing retinal axon guidance in zebrafish. Methods Cell Biol. 100, 3-26 (2010).
- Masai, I., et al. N-cadherin mediates retinal lamination, maintenance of forebrain compartments and patterning of retinal neurites. Development. 130 (11), 2479-2494 (2003).
- Raible, D. W., Elsen, J. S. Regulative interactions in zebrafish neural crest. Development. 122 (2), 501-507 (1996).
- White, R. M., et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Barsh, G. R., Isabella, A. J., Moens, C. B. Vagus motor neuron topographic map determined by parallel mechanisms of hox5 expression and time of axon initiation. Curr Biol. 27 (24), 3812-3825 (2017).
- Isabella, A. J., Stonick, J. A., Dubrulle, J., Moens, C. B. Intrinsic positional memory guides target-specific axon regeneration in the zebrafish vagus nerve. Development. 148 (18), 199706(2021).
- Westerfield, M. Chapter 1: General methods for zebrafish care. The Zebrafish Book. , (2000).
- Grant, P. K., Moens, C. B. The neuroepithelial basement membrane serves as a boundary and a substrate for neuron migration in the zebrafish hindbrain. Neural Dev. 5 (1), 9(2010).
- Konantz, J., Antos, C. L. Reverse genetic morpholino approach using cardiac ventricular injection to transfect multiple difficult-to-target tissues in the zebrafish larva. J Vis Exp. (88), e51595(2014).
- Novoa, B., Figueras, A. Zebrafish: model for the study of inflammation and the innate immune response to infectious diseases. Adv Exp Med Biol. 946, 253-275 (2012).
- Speirs, Z. C., et al. What can we learn about fish neutrophil and macrophage response to immune challenge from studies in zebrafish. Fish Shellfish Immunol. 148, 109490(2024).
- Trede, N. S., Langenau, D. M., Traver, D., Look, A. T., Zon, L. I. The use of zebrafish to understand immunity. Immunity. 20 (4), 367-379 (2004).
- Lam, S. H., Chua, H. L., Gong, Z., Lam, T. J., Sin, Y. M. Development and maturation of the immune system in zebrafish, Danio rerio: a gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 28 (1), 9-28 (2004).
- Wienholds, E., Schulte-Merker, S., Walderich, B., Plasterk, R. H. A. Target-selected inactivation of the zebrafish rag1 gene. Science. 297 (5578), 99-102 (2002).
- Petrie-Hanson, L., Hohn, C., Hanson, L. Characterization of rag1 mutant zebrafish leukocytes. BMC Immunol. 10, 8(2009).
- Roh-Johnson, M., et al. Macrophage-dependent cytoplasmic transfer during melanoma invasion in vivo. Dev Cell. 43 (5), 549-562 (2017).
- Bukrinsky, A., Griffin, K. J. P., Zhao, Y., Lin, S., Banerjee, U. Essential role of spi-1-like (spi-1l) in zebrafish myeloid cell differentiation. Blood. 113 (9), 2038-2046 (2009).
Réimpressions et autorisations
